
NR и NMN: путь NAD⁺, клеточный транспорт и клинические границы
Сравнение никотинамидрибозида и NMN от NAMPT, CD73 и NRK1 до крови и мышц: спор SLC12A8, изотопная фармакокинетика, положительные и отрицательные результаты испытаний.
Сравнение никотинамидрибозида и NMN от NAMPT, CD73 и NRK1 до крови и мышц: спор SLC12A8, изотопная фармакокинетика, положительные и отрицательные результаты испытаний.
Вопрос «что лучше повышает NAD⁺ — никотинамидрибозид (NR) или никотинамидмононуклеотид (NMN)?» имеет несколько разных экспериментальных ответов. Рост NAD⁺ в цельной крови, включение меченого предшественника в печёночный пул и изменение функции мышцы измеряют разные процессы. Ни один из них сам по себе не устанавливает, что вещество доставлено интактным в конкретную клетку, восстановило её свободный ядерный или митохондриальный NAD⁺ и улучшило значимый для человека исход. Для сопоставления двух молекул нужно последовательно проследить химическую форму, просвет кишечника, плазму, внеклеточные ферменты, мембрану и внутриклеточное использование; именно на этих переходах строгие выводы исходного текста чаще всего опережают данные.
Окисленная форма никотинамидадениндинуклеотида принимает гидрид в реакциях гликолиза, окисления пирувата, цикла трикарбоновых кислот и β-окисления, а NADH отдаёт восстановительные эквиваленты дыхательной цепи. В редокс-цикле кофермент меняет степень восстановления, но пиридиновый остов не расщепляется: . Такой цикл поддерживает катаболизм и синтез АТФ. Отдельно NAD⁺ расходуется как субстрат при деацилировании белков сиртуинами, АДФ-рибозилировании PARP и гидролизе CD38/CD157. Тогда освобождается никотинамид (NAM), который может вернуться в путь синтеза или пройти катаболизм. Поэтому концентрацию NAD⁺ определяют одновременно образование, потребление, реокисление NADH, обмен между компартментами и клеточный состав образца, а не только приём прекурсора.
Измеренный «общий NAD⁺» отличается от свободного отношения , которое задаёт направление обратимых дегидрогеназных реакций. Цитозольный и митохондриальный матриксный редокс-потенциалы различаются: цитозольное соотношение остаётся относительно окисленным, а матриксные дегидрогеназы и дыхательная цепь формируют иной режим. NAD⁺ и NADH не следует представлять как единый хорошо перемешанный сосуд: ядерный, цитозольный и матриксный пулы связаны потоками метаболитов и транспортом, но ферменты видят локальную доступность субстрата. Оценки свободных концентраций, полученные из индикаторных равновесий или флуоресцентных сенсоров, зависят от метода и ткани; переносить одно фиксированное соотношение на все клетки нельзя. Устойчивость митохондриального пула нельзя выводить только из присутствия NMNAT3: в млекопитающих описан перенос NAD⁺ через внутреннюю мембрану, а вклад локального синтеза и транспорта зависит от модели.
Сиртуины объединены потребностью в NAD⁺, но не тождественны по реакции и локализации. SIRT1, SIRT6 и SIRT7 преимущественно ядерные; SIRT2 главным образом цитозольный; SIRT3, SIRT4 и SIRT5 связаны с митохондриями. Для NAD⁺-зависимого деацетилирования продуктами служат деацетилированный белок, NAM и O-ацетил-АДФ-рибоза; SIRT4/5 имеют иные предпочтения к модификациям белков, поэтому их нельзя свести к единой «скорости деацетилирования». PARP1/2 реагируют на повреждения ДНК и строят поли(АДФ-рибозные) цепи, привлекающие репаративные комплексы, включая XRCC1. При чрезмерной активации PARP1 расход NAD⁺ становится частью энергетического повреждения, однако физиологическая репарация не является патологическим «дренажом». CD38 с преимущественно внеклеточной ориентацией каталитического домена и внутренними топологиями расщепляет NAD⁺ до NAM и АДФ-рибозы, а циклическая АДФ-рибоза связывает этот путь с кальциевой сигнализацией. Родственный CD157 не равен CD38 по активности и распределению.
В мышиных моделях возрастное увеличение CD38-положительных воспалительных клеток связано с уменьшением тканевого NAD⁺; выключение Cd38 ослабляло этот сдвиг. Модель SIRT1–HIF-1α–нарушение ядерно-митохондриальной координации также показывает причинную цепь в экспериментальных системах. У человека возрастной ход NAD⁺ неодинаков между тканями, методами экстракции и составом клеток. Поэтому «универсальное падение на заданный процент» и последующий неизбежный «митохондриальный коллапс» не являются установленным клиническим законом. Снижение NAD⁺ может быть следствием воспаления или другого заболевания и одновременно участвовать в их механизме; направление причинности требует интервенционных данных.
Путь de novo начинается с L-триптофана: TDO или IDO переводят его в N-формилкинуренин, далее через кинуренин, 3-гидроксиантранилат и реакцию HAAO формируется нестойкий ACMS. Его отвод ферментом ACMSD конкурирует со спонтанной циклизацией в хинолинат; сколько субстрата достигнет QPRT, определяется потоком и локальными условиями, а не одним справочным . QPRT использует фосфорибозилпирофосфат (PRPP) для образования NAMN. Далее NMNAT аденилирует NAMN в NAAD, а NADSYN1 с донором амидного азота глутамином завершает синтез NAD⁺. Здесь необходимы источники триптофана, PRPP и АТФ; ответ на дозу прекурсора не равен доступности этих ресурсов во всех тканях. Участие IDO в воспалении дополнительно связывает NAD-биосинтез с кинурениновым маршрутом, но усиление IDO не гарантирует повышения NAD⁺: промежуточные соединения расходуются и другими ветвями.
Никотиновая кислота (NA) входит через NAPRT: , после чего следуют NMNAT и NADSYN1. Это и есть ветвь Прейсса—Хандлера; называть так весь синтез из триптофана неточно. Клеточная экспрессия NAPRT различается, а микробное дезамидирование NAM может подать в эту ветвь дополнительный субстрат. Клинические различия ниациновых форм и ограничения их применения разобраны в материале о витамине B₃. Фармакологические дозы NA могут активировать HCAR2 и вызывать простагландин-опосредованный кожный прилив; отсутствие такого прилива после NR или NMN характеризует переносимость, но ничего не доказывает о старении или тканевой доставке.
В пути реутилизации NAMPT соединяет NAM с PRPP и формирует NMN: . Затем NMNAT использует АТФ: . Реакция NAMPT часто выступает регулирующим звеном при данном клеточном состоянии, но не является неизменно единственным «бутылочным горлышком»: концентрации NAM и PRPP, доступность АТФ, обратные связи и активность NMNAT меняют поток. Описанное в энзимологии фосфорилирование остатка гистидина NAMPT важно для катализа; из одного измеренного нельзя вывести, что фермент всегда полностью насыщен в живой ткани. Внеклеточный NAMPT обсуждают и как секретируемый белок, и как потенциальный регулятор, однако его функции нельзя автоматически приравнять к внутриклеточной реакции: внеклеточные субстраты и компартмент иные.
NMNAT1 локализована преимущественно в ядре, NMNAT2 ассоциирована с цитозолем, Гольджи и аксональным транспортом, а NMNAT3 связана с митохондриальными и некоторыми тканеспецифическими пулами. Падение короткоживущей NMNAT2 после повреждения аксона позволяет накопиться NMN и уменьшиться NAD⁺; изменённое отношение этих метаболитов участвует в активации SARM1, чья NADазная активность ускоряет аксональную дегенерацию. Это не означает, что пероральный NR предотвращает такую дегенерацию у человека. Также локализация NMNAT1 около ядерных потребителей не даёт основания утверждать обязательное прямое «туннелирование» каждой вновь образованной молекулы NAD⁺ к PARP1 или SIRT1. Компартментальная карта нужна, чтобы понять, почему одинаковое изменение цельнокровного маркера может сопровождаться разными локальными ответами.
NR — пиридиниевый рибонуклеозид, а NMN содержит ещё 5′-фосфат. Поэтому описание NR как строго «электронейтральной» молекулы, а NMN как универсального двухзарядного аниона химически некорректно: состояние ионизации учитывает и пиридиниевый центр, и фосфат, а соли включают противоион. Фосфат увеличивает гидратацию и энергетическую цену пассивного прохода через липидный бислой. Уравнение Борна иллюстрирует вклад электростатики, но не определяет проницаемость реальной мембраны с белками, изменяемой конформацией и возможным эндоцитозом. Вывод о низкой пассивной проницаемости NMN не тождествен выводу «интактный NMN физически никогда не входит в клетки».
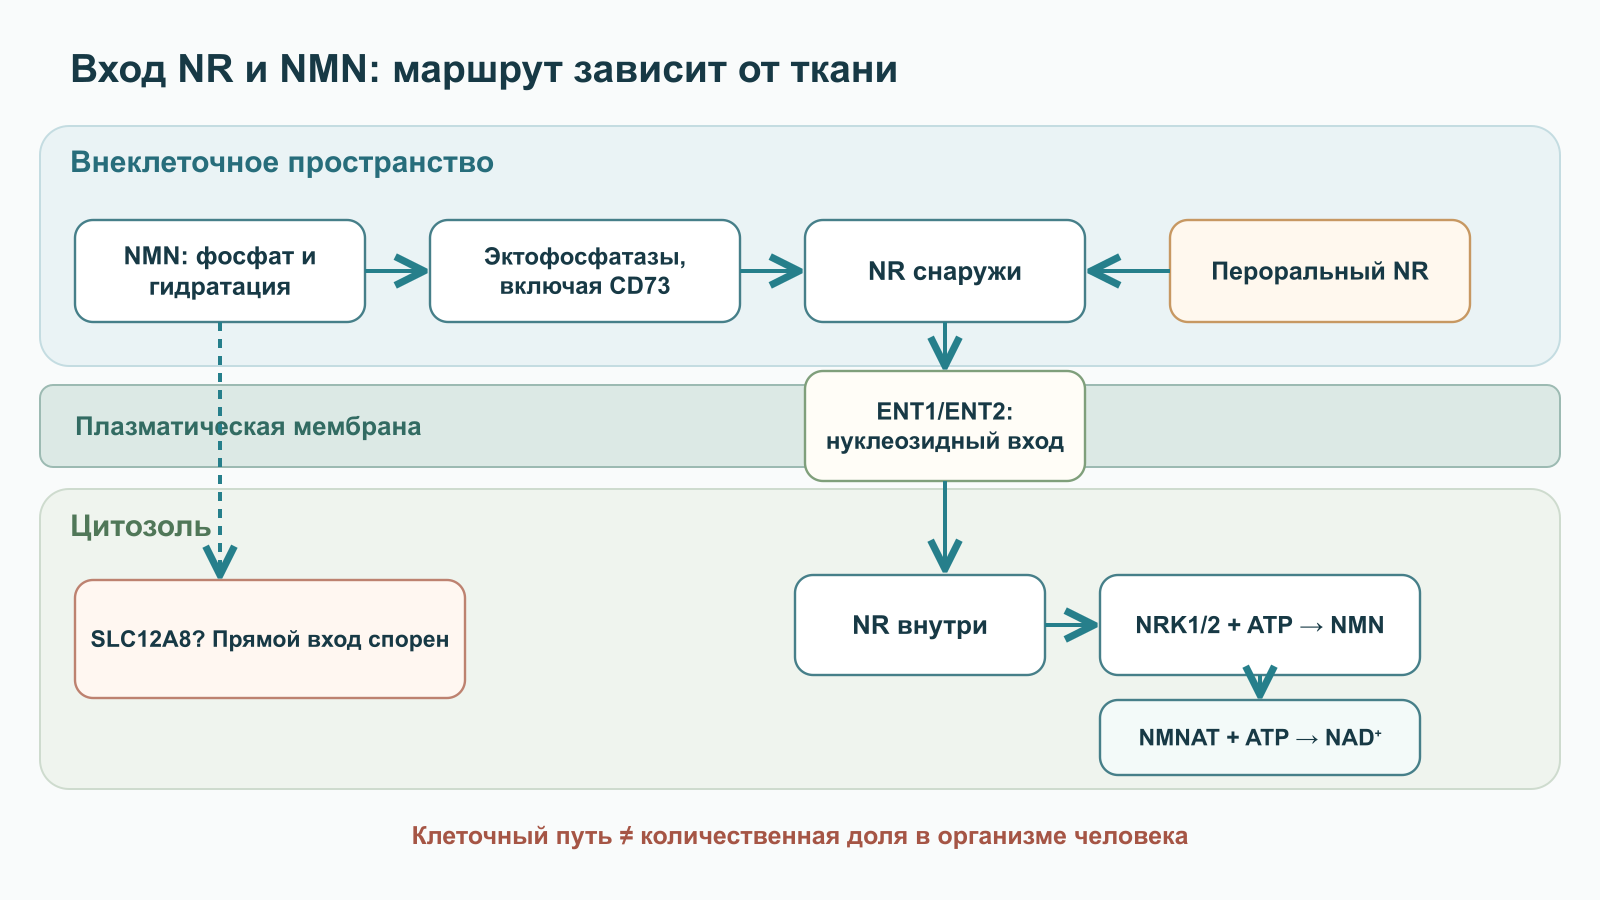
Один хорошо исследованный путь начинается во внеклеточной среде: экто-5′-нуклеотидазы снимают фосфат с NMN, образовавшийся NR пересекает плазмалемму, внутриклеточная NRK вновь фосфорилирует его до NMN. Реакции можно записать как и . CD73/NT5E — кандидат на первом шаге: это GPI-связанный наружной мембраной фермент, для которого AMP является хорошо известным субстратом. В опытах Ratajczak с первичными гепатоцитами и клеточными линиями изотопное мечение и выключение NRK1 поддержали схему внеклеточного образования NR. Однако частный результат при данных концентрациях, ферментном профиле и времени инкубации не доказывает единственный универсальный вход NMN и не задаёт фиксированную долю CD73 во всех тканях человека. У разных эктофосфатаз и сывороточных ферментов возможны пересекающиеся роли; отличать ферментный гидролиз до мембраны от внутриклеточной переработки позволяет именно метка на фосфате и пиридиновом скелете, а не только общий NAD⁺ в клетке.
Для NR описано участие переносчиков нуклеозидов, в частности ENT1/SLC29A1 и ENT2/SLC29A2; транспорт и его фармакологическое подавление зависят от клеточной линии и используемого ингибитора. Уравновешивающий перенос означает направление по градиенту, который внутри клетки поддерживает фосфорилирование NR. Экспрессия ENT2 в мышце и ENT1 в эндотелии делает эти белки биологически релевантными, но не позволяет указать единственную тканевую скорость переноса из общего профиля экспрессии. ENT4/PMAT нельзя без прямой демонстрации переносимости NR включать в доказанный список его переносчиков; особенности кислого pH при транспорте других субстратов такой демонстрацией не служат.
NRK1 (NMRK1) широко экспрессируется и играет важную роль в ответе клеток на экзогенный NR; NRK2 (NMRK2) особенно значима в поперечнополосатой мышце и может индуцироваться при повреждении в животных моделях. Обе используют АТФ, а полученный NMN далее аденилируют NMNAT1–3. Отличие NRK2 по месту экспрессии нельзя превращать в клиническую «аварийную терапию» кардиомиопатии без человеческих интервенционных исходов. Сравнение табличных NRK1 и NRK2 или CD73 с концентрацией после приёма мало что говорит о преобладании пути, пока неизвестны локальная концентрация свободного субстрата, экспрессия, , конкуренты и распределение по компартментам.
Спор о SLC12A8 требует симметричного описания. Grozio и соавторы сообщили о натрий-зависимом поглощении NMN и изменении ответа при манипуляциях со Slc12a8 в кишечных моделях мышей. Schmidt и Brenner оспорили трактовку данных и правдоподобность отнесения белка семейства SLC12 к специфическому переносчику NMN; изотопные эксперименты в других моделях выявили значительный вклад предварительной переработки. Комментарий оппонентов не является независимым доказательством невозможности любого прямого транспорта, как и один положительный эксперимент не доказывает доминирование SLC12A8 в человеческом кишечнике. Скорость появления метки в крови, изменение NAD⁺ после дозы и изменение экспрессии Slc12a8 также не эквивалентны доказательству прохождения интактного NMN через конкретную мембрану. Для выбора клинической формы вопрос пока не разрешён количественно в организме человека.
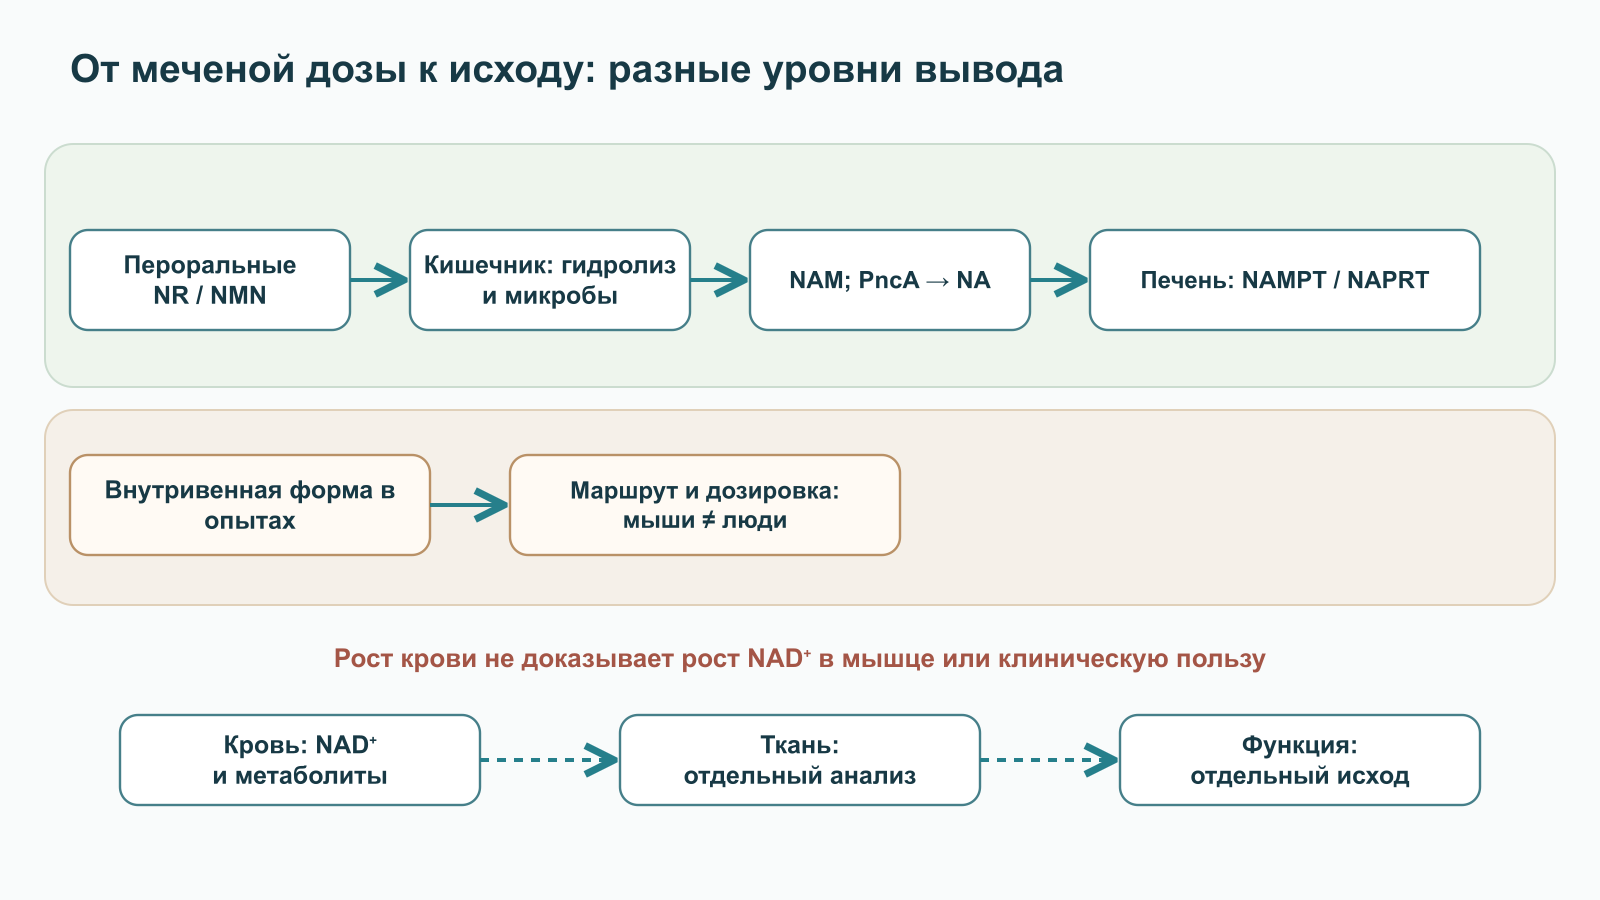
Пероральная молекула проходит просвет кишечника, ферменты щёточной каймы, микробное сообщество, энтероцит и печёночное первое прохождение. NR может расщепляться до NAM, а NMN — сперва дефосфорилироваться до NR; судьба зависит от маршрута введения и микробной среды. В изотопных экспериментах Liu и соавторов перорально введённые NR и NMN в значительной степени пополняли печёночный пул через NAM, тогда как внутривенное введение позволяло наблюдать и прямое поступление интактных форм в несколько тканей. Это важное различие исключает одинаковую фармакокинетическую характеристику для «NR вообще» или «NMN вообще». Из результата у мышей нельзя назначить человеку универсальную долю интактного всасывания или заявить, что после приёма вся доза неизбежно превращается в NAM.
Микробная никотинамидаза PncA дезамидирует NAM до никотиновой кислоты: . Последующая экспозиция NAAD и активность пути NAPRT помогают распознать переработку, однако метаболит в крови без изотопного разрешения не называет свой исходный атомный источник. В моделях с изменённой микробиотой вклад этого маршрута менялся. Экстраполировать наблюдения на всякого человека сложно из-за состава микробиоты, диеты, скорости транзита и того, достигла ли доза участка кишечника, где соответствующие организмы активны.
В портальной системе печень перерабатывает NAM, NA, NR и их продукты, а также сама высвобождает NAM. Поэтому изменение NAD⁺ в крови может отражать печёночный синтез и обмен, а не преимущество прямого проникновения исходной молекулы в нейрон, мышцу или миокард. Измерение LC–MS/MS особенно информативно, если различены NAD⁺, NADH, NAM, NR, NMN, NAAD, метилированные продукты и изотопом помеченные фрагменты, указаны матрица и момент забора. Цельная кровь, PBMC, плазма, мышечный биоптат и внеклеточные везикулы представляют разные системы. Изменение NAD⁺ в цельной крови нельзя без ткани и контроля состава клеток объявлять восстановлением митохондриального матрикса.
Нейрональная доставка — показательный пример этой границы. В работе Vreones после NR измеряли NAD⁺ и белковые маркеры в плазменных внеклеточных везикулах, обогащённых везикулами предположительно нейронного происхождения, у 22 участников исходного перекрёстного исследования. Авторы не брали ликвор и паренхиму головного мозга; тем более они не отслеживали прохождение интактного NR через гематоэнцефалический барьер. Результат интересен как косвенный биомаркер, но формулировки «прямое проникновение NR в мозг доказано» и «NMN обязан гидролизоваться на капиллярах» выходят за пределы эксперимента. Наличие нуклеозидных переносчиков на эндотелии даёт механизм-кандидат, который требует адресного теста у человека.
Для скелетной мышцы ситуация аналогична: экспрессия ENT и NRK не гарантирует повышение NAD⁺ в мышечном матриксе и не делает NAMPT несущественной. В исследовании Elhassan NR изменял метаболом NAD-связанных соединений и транскрипционные сигнатуры в биоптатах пожилых мужчин, но такие изменения нельзя автоматически переводить в прирост АТФ, выносливости или доказанную анти-воспалительную терапию. Аналогичный вопрос возникает при изучении митофагии: изменение клеточного сигнала не равно проверенному приросту работоспособности.
В экспериментальных системах NAD⁺-зависимая SIRT1 деацетилирует PGC-1α и факторы FOXO, меняя транскрипционные программы митохондриального биогенеза, стрессового ответа и метаболизма липидов. Упрощённая цепь выглядит как SIRT1 → состояние ацетилирования PGC-1α → взаимодействие с ядерными респираторными факторами → TFAM и экспрессия генов дыхательной системы. Она зависит также от активности ацетилтрансфераз, клеточного стресса, доступности кислорода и субстрата. Утверждение «капсула повышает NAD⁺, следовательно PGC-1α активируется и митохондрии размножаются» пропускает все эти измерения. FOXO1/3 регулируют, среди прочего, антиоксидантные ответы, а CPT1B участвует в доставке длинноцепочечных жирных кислот в митохондриальный окислительный контур; междоменная связь подробно разобрана в материале о карнитиновом челноке CPT1.
В матриксе SIRT3 деацетилирует метаболические белки, включая SOD2 и компоненты дыхательной цепи; IDH2 поддерживает NADPH-зависимую антиоксидантную сеть. Но повышение общего NAD⁺ в крови не измеряет доступность свободного NAD⁺ для SIRT3 в матриксе. Прямая проверка требует тканевого анализа, валидированных маркеров ацетилирования мишеней и функционального исхода. Для PARP1 также существует двойной эффект: NAD⁺ нужен репарации, а интенсивное повреждение ДНК активирует такой расход NAD⁺, который сам ведёт к энергетической уязвимости. Приписывать прекурсору способность «исправлять ДНК» по одной концентрации NAD⁺ нельзя.
В исходной литературе встречаются таблицы с для PARP1, CD38, SIRT1 и SIRT3, превращённые в ранжирование «кто первым получит NAD⁺». Это неверный переход от параметра очищенного фермента к клеточному потоку. Для фермента справедлива зависимость лишь при оговорённых условиях и без дополнительных ингибиторов; в клетке важны свободный данного компартмента, количество активного белка, конкурирующие субстраты, NAM как продуктовый ингибитор, повреждение ДНК и топология CD38. Нельзя на основании условных объявлять, что SIRT3 «выключается первой», а PARP1 «перехватывает» весь NAD⁺ при старении. Поэтому числовую иерархию исходника сохраняем как предмет критического разбора, а не как клиническое правило.
Большая часть интервенций проверяет метаболиты и переносимость в коротких исследованиях, а не длительность здоровой жизни. NR и NMN не сравнивались в достаточном прямом рандомизированном испытании с одинаковой популяцией, эквивалентной дозировкой, методом тканевого измерения и клинической конечной точкой. Поэтому «победа» одного прекурсора по отдельному раннему исследованию логически невозможна. Точные эффекты ниже относятся к названному дизайну; они не задают оптимальную дозу для общей популяции.
| Работа и форма | Кого и что изучали | Что обнаружено и где проходит граница |
|---|---|---|
| Trammell, NR | Небольшое исследование фармакокинетики у здоровых взрослых; разные разовые дозы | Дозозависимое изменение метаболома NAD в крови поддерживает пероральную биодоступность пути. Когорта и наблюдение не позволяют судить о заболеваниях и старении. |
| Martens, NR | Перекрёстное плацебо-контролируемое исследование, 30 людей среднего и старшего возраста, 1000 мг/сут 6 недель | Возрос NAD-связанный пул в крови. Сигнал по систолическому давлению в подгруппе с повышенным исходным САД носит исследовательский характер; он не устанавливает профилактику сосудистых событий и требует подтверждения. |
| Conze, NR | Рандомизированное исследование 8 недель у взрослых с избыточной массой, несколько доз NR | Цельнокровный NAD⁺ повышался дозозависимо; в изученный срок переносимость была приемлемой. Это не доказательство долгосрочной безопасности или органоспецифической пользы. |
| Elhassan, NR | Небольшое исследование пожилых мужчин с мышечными биоптатами после 21 дня | Изменились NAD-метаболиты мышцы и транскрипционные/воспалительные сигнатуры. Подтверждённого прироста физической функции на основании этих молекулярных исходов нет. |
| Irie, NMN | Десять здоровых мужчин, однократные дозы 100, 250 и 500 мг | Описана краткосрочная переносимость и метаболиты NAM. Малое открытое исследование не устанавливает безопасность длительных высоких доз. |
| Yoshino, NMN | 25 женщин после менопаузы с предиабетом и избытком массы; 250 мг/сут 10 недель | Улучшилась измеренная клэмпом мышечная инсулин-стимулированная утилизация глюкозы и появились сигнальные изменения в мышце. Это популяционно узкий физиологический результат, не доказательство профилактики диабета или универсального эффекта у мужчин. |
| Pencina, MIB-626 | 30 взрослых ≥45 лет с избыточной массой или ожирением; 1000 мг дважды в сутки 28 дней | Циркулирующий NAD⁺ вырос; между группами были краткосрочные сдвиги LDL, ДАД и массы тела. Мышечный NAD⁺ значимо не вырос; сила, аэробная способность, утомляемость, восстановление фосфокреатина и инсулиночувствительность не улучшились. |
| Huang, Uthever/NMN | 62 завершивших из 66 набранных взрослых; 300 мг/сут 60 дней | Межгрупповые изменения клеточного NAD⁺/NADH и дистанции 6-минутной ходьбы статистически незначимы ( и ). Рост внутри группы нельзя выдавать за эффект против плацебо. |
В Yoshino результат по клэмпу заслуживает внимания именно потому, что измерена функция конкретной ткани в определённой группе; нельзя заменять его словами «лечение инсулинорезистентности доказано». Pencina демонстрирует обратную полезную границу: большой рост крови не сопровождался ростом мышечного NAD⁺ или улучшением нескольких мышечных и метаболических исходов. Некоторые сердечно-сосудистые показатели улучшились в коротком малом испытании, но их клиническая воспроизводимость и причинный механизм неизвестны. Huang особенно нагляден методологически: и биохимический показатель, и 6-минутная ходьба сравнивались с плацебо, а межгруппового подтверждения не было. Оценка только процента внутри получавшей NMN группы создала бы ложный положительный вывод.
Отсутствуют данные, что повышение NAD⁺ в доступной матрице замедляет старение человека, предотвращает нейродегенерацию или продлевает жизнь. Даже положительный ответ тканей в биопсии не сообщает, какая часть эффекта вызвана прямым входом NR/NMN, а какая — NAM, NA и повторным синтезом. Доказательство преимуществ конкретной формы должно одновременно показать экспозицию, механизм и заранее выбранный клинический исход, с достаточным сроком и контролем множественных сравнений.
Когда образование NAM превышает его локальное включение через NAMPT, часть потока проходит через никотинамид-N-метилтрансферазу NNMT. Реакция переносит метильную группу S-аденозилметионина (SAM) на азот пиридинового кольца NAM. Затем альдегидоксидаза образует пиридоновые производные, в том числе 2-PY и 4-PY, которые выводятся почками. Измерение 1-MNA и 2-PY подтверждает направление катаболизма, но само по себе не доказывает повреждение метилома или дефицит фолата. Важно и уточнение химии: исходный текст ошибочно относил атаку NNMT к «карбамоилпиридиниевому азоту»; метилируется пиридиновый азот NAM.
SAH может гидролизоваться с образованием гомоцистеина, а гомоцистеин реметилируется через BHMT в печени с использованием бетаина либо через метионинсинтазу MTR с участием 5-метилтетрагидрофолата и витамина B₁₂. Эти процессы связаны с циклом метионина, но их скорости регулируются пищевым статусом, печенью, почками и обратимыми реакциями. Следовательно, стехиометрия NNMT не позволяет вычислить из массы капсулы величину подъёма гомоцистеина и не устанавливает универсальный опасный порог дозы NR/NMN. В исследованиях с ростом метилированных катаболитов нужно отдельно смотреть плазменный гомоцистеин, SAM/SAH в релевантной матрице и клинические исходы; отсутствие таких измерений оставляет гипотезу открытой.
Предложение автоматически добавлять бетаин в весовой пропорции 1:1 к NR/NMN, а также метилфолат и B₁₂ в фиксированных высоких дозах, не вытекает из представленных клинических испытаний. Даже если донор метила участвует в пути, это не доказывает пользу профилактического «буфера» без выявленного дефицита или повышенного гомоцистеина. Практическая оценка должна исходить из состояния человека, лекарств, функции почек и питания; при интерпретации лабораторных данных важно помнить о первичных причинах гипергомоцистеинемии. Биохимическая роль SAM и разница между субстратной схемой и клиническим эффектом подробно разобраны в материале о S-аденозилметионине и метилировании.
Исследованные в клинике дозы — описание протоколов, а не утверждённые «коридоры терапии старения». Хлорид NR применялся в пероральных исследованиях с измеренным ответом крови. Для NMN изучались обычные пероральные и микрокристаллические формы; данные о превосходстве сублингвальной, липосомальной или кишечнорастворимой формы по тканевой доставке и клиническому исходу человека в данной базе отсутствуют. Нельзя на основании конструкции капсулы утверждать, что она обходит первое прохождение, CD73 или SLC12A8. Если разработчик формы заявляет такую кинетику, нужны сравнительные исследования с одинаковой дозой, отслеживанием исходной молекулы и метаболитов, временем забора и заранее названной матрицей.
CLOCK:BMAL1 участвует в циркадной регуляции NAMPT, а NAD⁺ и SIRT1 обратной связью влияют на клеточные часы. Работы Nakahata и Ramsey показывают биологический механизм, но не устанавливают для всех людей максимум NAMPT строго в 07:00–09:00 и не доказывают, что вечерний NR или NMN вызывает бессонницу. Фаза циркадных процессов зависит от вида, ткани, сна и времени питания. Поэтому перенос клеточной или мышиной фазы на «обязательное утреннее окно» в клиническом назначении методологически неверен; время приёма в исследованиях следует описывать как часть протокола, а не как лечебный закон.
Ингибирование CD38 флавоноидами, включая апигенин, наблюдали в биохимических и клеточных системах. Для выбора пероральной комбинации нужны данные о достижимой свободной концентрации в нужном компартменте, специфичности и клиническом результате; значение очищенного фермента не превращает дозу апигенина в терапию дефицита NAD⁺. Полезную связь между CD38 как мишенью и реальными пределами флавоноидных данных показывает материал об апигенине, CD38 и сне. Аналогично взаимодействия ресвератрола/птеростильбена с SIRT1 зависят от субстрата и условий анализа: «активация сиртуина» не равна удлинению жизни человека. Одновременное добавление уролитина A или PQQ может служить исследовательской гипотезой о качестве митохондрий и биогенезе, но не доказанной «триадой долголетия» и не основанием для фиксированного многокомпонентного протокола.
Лабораторный контроль в испытаниях включал безопасность и метаболиты в заданные сроки, а не универсальный курс каждые 12 недель. Если NR или NMN рассматриваются в исследовательском или индивидуально клиническом контексте, следует зафиксировать исходное состояние, состав препарата, сопутствующие средства, функцию печени и почек, а анализировать изменения тем же методом и в той же матрице. Общий NAD⁺ в крови не является валидированным самостоятельным тестом «биологического возраста». Гомоцистеин интерпретируют с учётом локальных референсов и факторов риска; один узкий «нормальный» диапазон из исходного текста нельзя назначать всем лабораториям и популяциям.
| Вопрос сравнения | NR | NMN | Что действительно требуется для ответа |
|---|---|---|---|
| Химический переход у клеточной поверхности | Рибонуклеозид; вход через описанные нуклеозидные переносчики возможен | Фосфорилированная молекула; дефосфорилирование во многих моделях, прямой транспорт обсуждается | Изотопное прослеживание исходной молекулы и фосфата в конкретной ткани человека |
| Внутриклеточный маршрут | NRK1/2 → NMN → NMNAT → NAD⁺ | При входе интактным: NMNAT; после дефосфорилирования: NRK → NMNAT | Компартментальная концентрация, активность ферментов и поток, а не один общий NAD⁺ |
| Человеческая доказательная база | Повышение маркеров NAD; отдельные малые физиологические сигналы | Повышение маркеров NAD; один тканевый клэмп-результат и ряд отрицательных функциональных исходов | Прямое рандомизированное сравнение с заранее заданным клиническим исходом |
| ГЭБ, мышцы, «антиэйджинг» | Прямая доставка интактного NR в мозг человека не доказана приведённой работой EV | Универсальная непроницаемость или преимущество определённой формы не установлены | Тканеспецифичная фармакокинетика, безопасный срок и клиническая репликация |
Это нарративная редакционная переработка предоставленного корпуса литературы, а не систематический обзор или формальная оценка GRADE. При подготовке 4 октября 2026 года адресно сверены первичные работы, от которых зависят ключевые границы вывода: клеточная переработка NMN и NRK1, путь пероральной/внутривенной метки, матрица Vreones и межгрупповые результаты клинических испытаний Pencina и Huang. Остальные источники используются в рамках исходной библиографии без заявления о повторном полном поиске, исчерпывающем охвате, независимой рецензии или проверке каждой ссылки. Особую неопределённость создают различия видов, доз, экспозиции, химических форм, предварительной обработки образца, тканей и длительности наблюдения. Отрицательные результаты некоторых конечных точек не доказывают невозможность любого эффекта в другой популяции, но запрещают объявлять пользу уже установленной.
Различие NR и NMN прежде всего задаёт проверяемые гипотезы о внеклеточном гидролизе, переносе и локальном синтезе NAD⁺. Обе формы могут поднять доступные маркеры NAD-метаболизма у человека; из этих маркеров пока нельзя выбрать универсально лучший прекурсор или вывести профилактику старения. Наиболее содержательные следующие исследования должны измерять параллельно меченый поток, конкретную ткань и клинически значимый заранее выбранный исход, а также показывать отрицательные результаты рядом с положительными.
Это нарративный обзор NR, NMN и обмена NAD⁺ на основе подборки из 29 публикаций. В редакции от 4 октября 2026 года адресно сверены ключевые расхождения в интерпретации фармакокинетических и клинических результатов. Исчерпывающий поиск по заранее заданному протоколу, метаанализ и формальная оценка риска смещения каждой работы не проводились.
Клеточные пути превращения предшественников, измерение NAD⁺ в крови, содержание в отдельной ткани и клинические исходы рассматриваются отдельно. Данные о выделенных из плазмы везикулах не являются прямым измерением метаболита в мозге. Результат зависит от формы, пути введения, длительности, популяции и конечной точки; изменение биомаркера не устанавливает улучшения функции или долгосрочной пользы.
NMN содержит фосфат, который затрудняет пассивный проход через мембрану. В ряде клеточных моделей он сначала дефосфорилируется во внеклеточный NR; универсальность этого пути для всех тканей человека и вклад прямого транспорта остаются неустановленными.
Нет. Цельная кровь, мышечный биоптат и мозг — разные матрицы. В одном исследовании NMN значительно поднял циркулирующий NAD⁺ без значимого улучшения мышечного NAD⁺ и функциональных тестов.
Достаточного прямого сравнительного испытания с одинаковой популяцией, дозой, тканевыми измерениями и клиническим исходом нет. Выбор по отдельным биомаркерам был бы преждевременным.
NNMT расходует SAM при метилировании никотинамида, но клиническая необходимость фиксированного соотношения бетаина к NR/NMN не подтверждена представленными испытаниями.