
NR және NMN: NAD⁺ жолы, жасушалық тасымал және клиникалық шектер
Никотинамид рибозиді мен NMN салыстыруы: NAMPT, CD73 және NRK1-ден қан мен бұлшықетке дейін; SLC12A8 дауы, изотоптық фармакокинетика және сынақтардың аралас нәтижелері.
Никотинамид рибозиді мен NMN салыстыруы: NAMPT, CD73 және NRK1-ден қан мен бұлшықетке дейін; SLC12A8 дауы, изотоптық фармакокинетика және сынақтардың аралас нәтижелері.
«NAD⁺ деңгейін қайсысы жақсы көтереді — никотинамид рибозиді (NR) ме, әлде никотинамид мононуклеотиді (NMN) ме?» деген сұраққа эксперименттер бірнеше түрлі жауап береді. Тұтас қандағы NAD⁺ өсуі, таңбаланған прекурсордың бауыр қорына қосылуы және бұлшықет функциясының өзгеруі әртүрлі үдерістерді өлшейді. Бұлардың ешқайсысы заттың нақты жасушаға өзгеріссіз жеткенін, оның бос ядролық не митохондриялық NAD⁺ деңгейін қалпына келтіргенін және адам үшін маңызды нәтижені жақсартқанын өздігінен дәлелдемейді. Екі молекуланы салыстыру үшін химиялық түрін, ішек қуысын, плазманы, жасушадан тыс ферменттерді, мембрананы және жасушаішілік пайдалануды ретімен қадағалау керек; бастапқы мәтіндегі батыл тұжырымдар көбіне осы ауысуларда деректерден озып кетеді.
Никотинамид-адениндинуклеотидтің тотыққан түрі гликолиз, пируваттың тотығуы, трикарбон қышқылдары циклі және β-тотығу кезінде гидрид қабылдайды, ал NADH тыныс алу тізбегіне тотықсыздандырғыш эквиваленттер береді. Редокс-циклде коферменттің тотықсыздану дәрежесі өзгереді, бірақ пиридин қаңқасы ыдырамайды: . Бұл цикл катаболизм мен АТФ синтезін қолдайды. Бұдан бөлек NAD⁺ сиртуиндердің ақуыздарды деацилдеуіне, PARP арқылы АДФ-рибозилденуге және CD38/CD157 гидролизіне субстрат ретінде жұмсалады. Нәтижесінде никотинамид (NAM) босайды; ол синтез жолына қайта оралуы немесе катаболизмге түсуі мүмкін. Сондықтан NAD⁺ концентрациясын прекурсор қабылдау ғана емес, синтез, жұмсалу, NADH қайта тотығуы, компартменттер арасындағы алмасу және үлгідегі жасушалар құрамы бірге анықтайды.
Өлшенген «жалпы NAD⁺» қайтымды дегидрогеназа реакцияларының бағытын белгілейтін бос қатынасынан өзгеше. Цитозоль мен митохондрия матриксінің редокс-потенциалдары бірдей емес: цитозольдік қатынас салыстырмалы түрде тотыққан күйде қалады, ал матрикс дегидрогеназалары мен тыныс алу тізбегі басқа ортаны қалыптастырады. NAD⁺ пен NADH-ты біркелкі араласқан жалғыз қор ретінде елестетуге болмайды. Ядролық, цитозольдік және матрикстік пулдар метаболит ағыны мен тасымал арқылы байланысқанымен, ферменттер жергілікті субстратқа қол жеткізеді. Индикатор тепе-теңдігі немесе флуоресценттік сенсорлардан алынған бос концентрациялар әдіс пен тінге тәуелді; бір тұрақты қатынасты барлық жасушаға қолдануға болмайды. Митохондриялық пулдың тұрақтылығын NMNAT3 бар екеніне қарап қана қорытындылау мүмкін емес: сүтқоректілердің ішкі мембранасы арқылы NAD⁺ тасымалы сипатталған, ал жергілікті синтез бен тасымал үлесі модельге байланысты.
Сиртуиндерге NAD⁺ ортақ қажет болғанымен, реакциясы мен орналасуы әртүрлі. SIRT1, SIRT6 және SIRT7 негізінен ядрода; SIRT2 көбіне цитозольде; SIRT3, SIRT4 және SIRT5 митохондриямен байланысты. NAD⁺-тәуелді деацетилдеу деацетилденген ақуыз, NAM және O-ацетил-АДФ-рибоза түзеді. SIRT4/5 басқа ақуыз модификацияларына да бейім, сондықтан бәрін бір «деацетилдеу жылдамдығына» біріктіруге болмайды. PARP1/2 ДНҚ зақымына жауап беріп, XRCC1 сияқты репарация кешендерін тартатын поли(АДФ-рибоза) тізбектерін құрады. PARP1 шамадан тыс белсенсе, NAD⁺ жұмсалуы энергетикалық зақымға үлес қосуы мүмкін, алайда физиологиялық репарация патологиялық «ағып кету» емес. CD38 каталитикалық домені негізінен жасушадан тыс бағытталғанымен, жасушаішілік топологиялары да бар; ол NAD⁺-ты NAM мен АДФ-рибозаға ыдыратады, ал циклдік АДФ-рибоза кальций сигналын осы жолмен байланыстырады. Туыстас CD157 белсенділігі мен таралуы жағынан CD38-ге тең емес.
Тышқан модельдерінде жас ұлғайған сайын CD38-оң қабыну жасушаларының көбеюі тіндегі NAD⁺ азаюымен байланысты; Cd38-ді өшіру бұл өзгерісті әлсіретті. SIRT1–HIF-1α–ядро мен митохондрия үйлесімінің бұзылуы моделі де эксперименттік жүйелерде себеп-салдар тізбегін көрсетеді. Адамдарда NAD⁺-тың жасқа байланысты өзгерісі тінге, экстракция әдісіне және жасуша құрамына қарай әртүрлі. Сондықтан «белгілі бір пайызға әмбебап төмендеу» және одан кейінгі міндетті «митохондриялық күйреу» дәлелденген клиникалық заң емес. NAD⁺ азаюы қабынудың не басқа аурудың салдары болуы әрі оның механизміне қатысуы мүмкін; себеп бағытын анықтау үшін интервенциялық дерек қажет.
De novo жолы L-триптофаннан басталады: TDO немесе IDO оны N-формилкинуренинге айналдырады, кейін кинуренин мен 3-гидроксиантранилат арқылы HAAO тұрақсыз ACMS түзеді. ACMSD бұл аралық өнімді басқа жаққа бұрып, оның хинолинатқа өздігінен циклденуімен бәсекелеседі. QPRT-қа жететін субстрат мөлшері бір анықтамалық -ге емес, ағын мен жергілікті жағдайға байланысты. QPRT фосфорибозилпирофосфатты (PRPP) пайдаланып NAMN түзеді. Одан кейін NMNAT NAMN-ды NAAD-қа аденилдейді, ал NADSYN1 глутаминді амид азотының доноры ретінде пайдаланып NAD⁺ синтезін аяқтайды. Бұл жолға триптофан, PRPP және АТФ көздері қажет; прекурсор дозасына жауап барлық тінде осы ресурстар бар дегенді білдірмейді. IDO-ның қабынудағы рөлі NAD биосинтезін кинуренин жолымен байланыстырады, бірақ IDO артуы NAD⁺ міндетті түрде көбейеді деген сөз емес: аралық заттарды басқа тармақтар да пайдаланады.
Никотин қышқылы (NA) NAPRT арқылы енеді: , содан кейін NMNAT пен NADSYN1 қатысады. Бұл — Прейсс–Хэндлер жолы; триптофаннан жүретін бүкіл синтезді осылай атау дәл емес. Жасушадағы NAPRT экспрессиясы әркелкі, ал микробтық NAM деамидтелуі осы тармаққа қосымша субстрат бере алады. Ниацин түрлерінің клиникалық айырмашылықтары мен шектеулері B₃ дәрумені туралы материалда талданған. NA фармакологиялық дозада HCAR2-ні белсендіріп, простагландин арқылы терінің қызаруын туғызуы мүмкін; NR не NMN-нен кейін мұндай қызарудың болмауы төзімділікті сипаттайды, бірақ қартаю не тінге жеткізілу туралы ештеңе дәлелдемейді.
Қайта пайдалану жолында NAMPT NAM мен PRPP-ті қосып, NMN түзеді: . Содан кейін NMNAT АТФ қолданады: . NAMPT белгілі жасушалық күйде реттелетін қадам болуы мүмкін, бірақ ол әрдайым жалғыз «тар мойын» емес: NAM және PRPP концентрациясы, АТФ қолжетімділігі, кері байланыс пен NMNAT белсенділігі ағынды өзгертеді. Ферментологияда сипатталған NAMPT гистидин қалдығының фосфорлануы катализге маңызды; бір өлшенген тірі тінде фермент үнемі толық қанығады дегенді білдірмейді. Жасушадан тыс NAMPT секреттелетін ақуыз және ықтимал реттеуші ретінде де зерттеледі, бірақ субстрат пен компартмент басқа болғандықтан оны жасушаішілік реакцияға автоматты түрде теңеуге болмайды.
NMNAT1 негізінен ядрода, NMNAT2 цитозоль, Гольджи аппараты және аксон тасымалымен байланысты, ал NMNAT3 митохондриялық және кейбір тінге тән пулдарда кездеседі. Аксон зақымданған соң қысқа өмір сүретін NMNAT2 азайып, NMN жиналып NAD⁺ төмендеуі мүмкін; метаболиттер қатынасының өзгеруі SARM1 белсенуіне қатысады, ал оның NADаза белсенділігі аксон дегенерациясын үдетеді. Бұл ауыз арқылы қабылданатын NR адамда осындай дегенерацияның алдын алады дегенді білдірмейді. NMNAT1 ядролық тұтынушыларға жақын орналасқандықтан, жаңадан түзілген әр NAD⁺ молекуласы PARP1 не SIRT1-ге міндетті түрде тікелей «арналған» деуге де негіз жоқ. Компартмент картасы тұтас қан маркеріндегі бірдей өзгеріс неге жергілікті әртүрлі жауаппен қатар жүретінін түсіндіреді.
NR — пиридиний рибонуклеозиді, ал NMN құрамында қосымша 5′-фосфат бар. Сондықтан NR-ді қатаң «электрбейтарап», NMN-ді әмбебап екі зарядты анион деп сипаттау химиялық тұрғыдан дұрыс емес: иондалу күйі пиридиний орталығы мен фосфатты ескереді, ал тұздарда қарсы ион болады. Фосфат гидратацияны және липидті қос қабаттан пассивті өтудің энергетикалық құнын арттырады. Борн теңдеуі электростатиканың үлесін көрсетеді, бірақ ақуызы, конформациясы өзгеретін және эндоцитозы мүмкін нақты мембрана өткізгіштігін анықтамайды. NMN-нің пассивті өткізгіштігі төмен деген қорытынды «интакт NMN жасушаға ешқашан физикалық кірмейді» дегенмен бірдей емес.
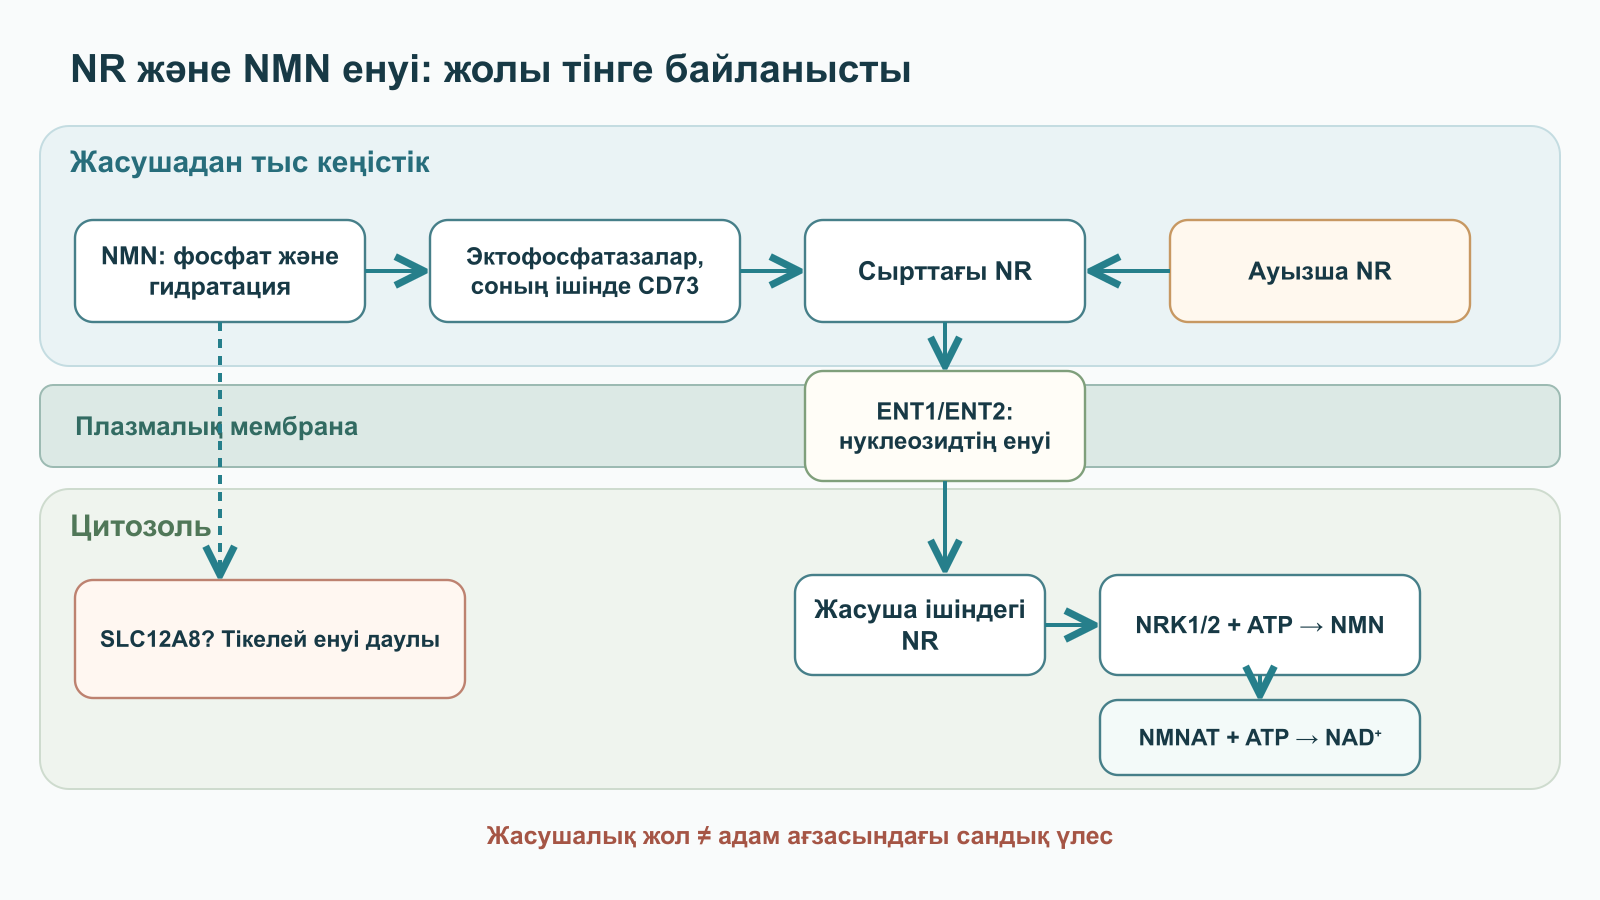
Жақсы зерттелген жол жасушадан тыс ортада басталады: экто-5′-нуклеотидазалар NMN-нен фосфатты алып тастайды, пайда болған NR плазмалық мембранадан өтеді, ал жасуша ішіндегі NRK оны қайта фосфорлап NMN түзеді. Реакцияларды былай көрсетуге болады: және . CD73/NT5E — алғашқы қадамға ықтимал фермент: ол GPI арқылы сыртқы мембранаға бекіген, AMP оның жақсы белгілі субстраты. Ratajczak-тың бастапқы гепатоциттер мен жасуша желілеріндегі тәжірибелерінде изотоптық таңбалау және NRK1-ді өшіру жасушадан тыс NR түзілу схемасын қолдады. Алайда нақты концентрация, фермент профилі және инкубация уақыты кезіндегі жеке нәтиже NMN-нің жалғыз әмбебап кіру жолын дәлелдемейді әрі CD73 үлесін адам тіндерінде бірдей деп белгілемейді. Әртүрлі эктофосфатазалар мен сарысу ферменттерінің қызметі қабаттасуы ықтимал; мембранаға дейінгі гидролизді жасушаішілік өңдеуден ажырату үшін жасушадағы жалпы NAD⁺-ты ғана емес, фосфат пен пиридин қаңқасындағы таңбаны бақылау қажет.
NR тасымалына нуклеозид тасымалдағыштары, әсіресе ENT1/SLC29A1 және ENT2/SLC29A2 қатысатыны сипатталған; тасымал және оны дәрімен тежеу жасуша желісі мен ингибиторға қарай өзгереді. Теңгерімді тасымал жасуша ішінде NR фосфорлануын қолдайтын градиентпен жүреді. Бұлшықеттегі ENT2 және эндотелийдегі ENT1 экспрессиясы олардың биологиялық маңызын көрсетеді, бірақ жалпы экспрессия профилінен жалғыз тіндік тасымал жылдамдығын шығаруға болмайды. NR тасымалдайтыны тікелей дәлелденбейінше ENT4/PMAT-ты дәлелденген тасымалдағыштар тізіміне қоспау керек; басқа субстраттарды төмен pH кезінде тасымалдауы бұған дәлел емес.
NRK1 (NMRK1) кең таралған және экзогенді NR-ге жасушалық жауапта маңызды; NRK2 (NMRK2) көлденең жолақты бұлшықетте ерекше маңызды, жануар модельдерінде зақымнан кейін индукциялануы мүмкін. Екеуі де АТФ пайдаланады, кейін NMNAT1–3 түзілген NMN-ді аденилдейді. NRK1 мен NRK2 орналасуындағы айырмашылықты адамдардағы интервенциялық нәтижесіз кардиомиопатияға арналған клиникалық «құтқару емі» деп көрсетуге болмайды. NRK1, NRK2 не CD73 үшін кестелік мәндерін дозадан кейінгі концентрациямен салыстыру, жергілікті бос субстрат, экспрессия, , бәсекелес субстраттар және компартмент бойынша таралу белгісіз кезде қай жол басым екенін аз түсіндіреді.
SLC12A8 дауын екі жағын да ескеріп сипаттау қажет. Grozio және әріптестері тышқанның ішек модельдерінде натрийге тәуелді NMN сіңуін және Slc12a8 өзгертілгендегі жауапты хабарлады. Schmidt пен Brenner деректер түсіндірмесіне және SLC12 тұқымдас ақуызын NMN-нің арнайы тасымалдағышы деп танудың қисындылығына қарсы уәж айтты; басқа модельдердегі изотоптық тәжірибелер алдын ала өңдеудің елеулі үлесін анықтады. Сын пікірдің өзі кез келген тікелей тасымал мүмкін емес деген тәуелсіз дәлел емес; жалғыз оң тәжірибе де адам ішегінде SLC12A8 басым екенін дәлелдемейді. Қанда таңбаның пайда болуы, дозадан кейін NAD⁺ өзгеруі және Slc12a8 экспрессиясының ауысуы да интакт NMN нақты мембранадан өтті деген дәлелге тең емес. Клиникалық түрді таңдауға қатысты бұл мәселе адамда сандық тұрғыдан әлі шешілмеген.
Ауыз арқылы түскен молекула ішек қуысынан, қылшық жиек ферменттерінен, микробтық қауымдастықтан, энтероциттен және бауырдағы алғашқы өтуден өтеді. NR NAM-ге ыдырауы мүмкін, ал NMN әуелі NR-ге дейін дефосфорлануы ықтимал; тағдыры енгізу жолы мен микробтық ортаға байланысты. Liu және әріптестерінің изотоптық тәжірибелерінде ауыз арқылы берілген NR мен NMN бауыр қорын көбіне NAM арқылы толықтырды; көктамыр ішіне енгізу бірнеше тінге интакт түрлердің тікелей жетуін де бақылауға мүмкіндік берді. Бұл айырмашылық «жалпы NR» не «жалпы NMN» үшін бірыңғай фармакокинетикалық сипаттама жасауға жол бермейді. Тышқан нәтижесі адамдардағы интакт сіңудің әмбебап үлесін анықтамайды және қабылданған дозаның бәрі міндетті түрде NAM-ге айналады деп айтуға негіз болмайды.
Микробтық никотинамидаза PncA NAM-ді никотин қышқылына дейін деамидтейді: . Кейінгі NAAD экспозициясы мен NAPRT жолының белсенділігі өңделуді айқындауға көмектеседі, бірақ изотоптық ажыратуы жоқ қандағы метаболит оның атомдарының бастапқы көзін көрсетпейді. Микробиотасы өзгертілген модельдерде бұл жолдың үлесі ауысқан. Мұндай бақылауларды барлық адамға көшіру қиын: микробиота құрамы, тамақтану, транзит жылдамдығы және доза тиісті микроорганизмдер белсенді ішек бөлігіне жеткен-жетпегені өзгеше.
Қақпа жүйесінде бауыр NAM, NA, NR және олардың өнімдерін өңдейді әрі өзі де NAM бөледі. Сондықтан қандағы NAD⁺ өзгерісі бастапқы молекуланың нейронға, бұлшықетке не миокардқа тікелей жақсырақ өтуін емес, бауырдағы синтез бен алмасуды көрсетуі мүмкін. LC–MS/MS әдісі NAD⁺, NADH, NAM, NR, NMN, NAAD, метилденген өнімдер мен изотоппен таңбаланған фрагменттерді ажыратып, үлгі матрицасы мен алынған уақытты көрсеткенде ерекше ақпарат береді. Тұтас қан, PBMC, плазма, бұлшықет биопсиясы және жасушадан тыс везикулалар — әртүрлі жүйелер. Тін дерегі мен жасуша құрамы бақылауынсыз тұтас қандағы NAD⁺ өзгерісін митохондрия матриксінің қалпына келуі деп атауға болмайды.
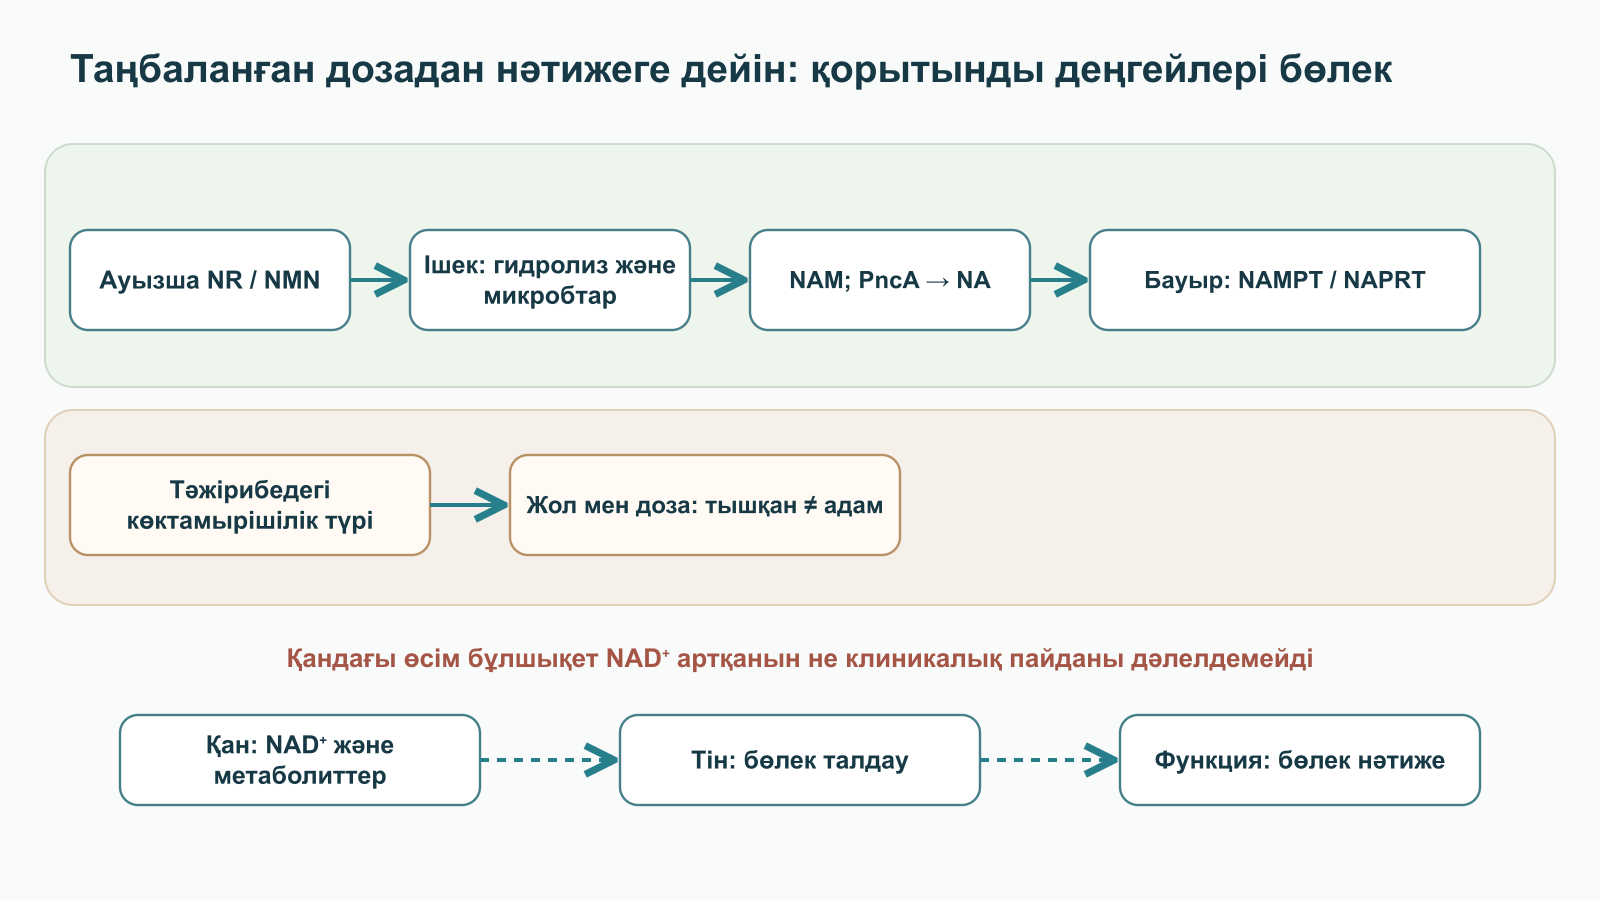
Нейронға жеткізілу осы шектің жақсы мысалы. Vreones жұмысында NR қабылдағаннан кейін бастапқы айқаспалы зерттеудің 22 қатысушысынан нейроннан шыққан болуы ықтимал везикулалармен байытылған плазмалық жасушадан тыс везикулалардағы NAD⁺ пен ақуыз маркерлері өлшенді. Авторлар жұлын сұйықтығын да, ми паренхимасын да алған жоқ; интакт NR-дің гематоэнцефалдық бөгеттен өтуін тіпті бақыламады. Нәтиже жанама биомаркер ретінде қызық, алайда «NR-дің миға тікелей енуі дәлелденді» немесе «NMN капиллярларда міндетті түрде гидролизденуі керек» деген тұжырым тәжірибеден тыс кетеді. Эндотелийдегі нуклеозид тасымалдағыштары ықтимал механизм ұсынады, оны адамда арнайы тексеру қажет.
Қаңқа бұлшықетінде де жағдай осыған ұқсас: ENT және NRK экспрессиясы бұлшықет матриксіндегі NAD⁺ артуына кепіл болмайды және NAMPT-ты маңызсыз етпейді. Elhassan зерттеуінде NR жасы үлкен ерлердің биопсияларындағы NAD-қа қатысты метаболом мен транскрипциялық белгілерді өзгертті, бірақ оларды АТФ, төзімділік өсімі не дәлелденген қабынуға қарсы ем деп автоматты түрде түсіндіруге болмайды. Митофагия зерттеуінде де жасушалық сигналдың өзгеруі өнімділіктің дәлелденген артуына тең емес.
Эксперименттік жүйелерде NAD⁺-тәуелді SIRT1 PGC-1α мен FOXO факторларын деацетилдеп, митохондриялық биогенез, стресс жауабы және липид метаболизміне арналған транскрипциялық бағдарламаларды өзгертеді. Ықшам тізбек: SIRT1 → PGC-1α ацетилдену күйі → ядролық тыныс алу факторларымен әрекеттесу → TFAM және тыныс алу жүйесі гендерінің экспрессиясы. Бұған ацетилтрансферазалар белсенділігі, жасушалық стресс, оттегі мен субстрат қолжетімділігі де әсер етеді. «Капсула NAD⁺ деңгейін көтереді, демек PGC-1α белсеніп, митохондрия көбейеді» деген тұжырым осы өлшемдердің бәрін аттап өтеді. FOXO1/3 антиоксидант жауаптарды да реттейді; CPT1B ұзын тізбекті май қышқылдарын митохондриялық тотығу жүйесіне жеткізуге қатысады. Бұл салааралық байланыс CPT1 карнитин тасымалы туралы материалда егжей-тегжейлі қарастырылған.
Матриксте SIRT3 метаболизм ақуыздарын, соның ішінде SOD2 мен тыныс алу тізбегі компоненттерін деацетилдейді; IDH2 NADPH-тәуелді антиоксидант желісін қолдайды. Бірақ қандағы жалпы NAD⁺ артуы матрикстегі SIRT3-ке қолжетімді бос NAD⁺ мөлшерін өлшемейді. Тікелей тексеру үшін тін талдауы, нысана ақуыз ацетилденуінің валидтелген маркерлері және функционалдық нәтиже керек. PARP1-дің де қосарлы әсері бар: репарацияға NAD⁺ қажет, ал ДНҚ-ның ауыр зақымдануы NAD⁺ жұмсалуын күшейтіп, өзі энергетикалық осалдық туғызуы мүмкін. NAD⁺ концентрациясының бір өлшеміне қарап прекурсор «ДНҚ-ны түзетеді» деуге болмайды.
Бастапқы әдебиеттегі PARP1, CD38, SIRT1 және SIRT3 үшін берілген кестелері «NAD⁺-ты кім бірінші алады?» деген рейтингке айналдырылған. Бұл тазартылған фермент параметрінен жасушалық ағынға негізсіз секіру. тәуелділігі тек нақты шарттарда әрі қосымша тежегіштер болмағанда қолданылады; жасушада тиісті компартменттегі бос , белсенді ақуыз мөлшері, бәсекелес субстраттар, өнім тежегіші NAM, ДНҚ зақымы және CD38 топологиясы маңызды. Шартты мәндері SIRT3 «бірінші сөнеді» немесе қартаюда PARP1 барлық NAD⁺-ты «тартып алады» дегенді дәлелдемейді. Сондықтан бастапқы мәтіндегі сандық иерархия клиникалық қағида емес, сыни талқылаудың нысаны ретінде беріледі.
Интервенциялардың көбі дені сау өмір ұзақтығын емес, қысқа зерттеулерде метаболиттер мен төзімділікті қарайды. NR мен NMN бірдей популяцияда, балама дозамен, бірдей тін өлшемімен және клиникалық соңғы нүктемен жеткілікті қуаты бар тікелей рандомизацияланған сынақта салыстырылмаған. Сондықтан бөлек ерте зерттеулерге сүйеніп прекурсорлардың бірін «жеңімпаз» деу қисынсыз. Төмендегі нақты әсерлер аталған дизайнға ғана қатысты және жалпы популяция үшін оңтайлы дозаны анықтамайды.
| Зерттеу және түрі | Популяция мен бағалау | Нәтиже және оның шегі |
|---|---|---|
| Trammell, NR | Дені сау ересектердегі шағын фармакокинетикалық зерттеу; әртүрлі бір реттік дозалар | Қандағы NAD метаболомының дозаға тәуелді өзгеруі ауыз арқылы қабылданатын жолдың биожетімділігін қолдайды. Іріктеме мен бақылау кезеңі аурулар не қартаю туралы қорытынды бермейді. |
| Martens, NR | Плацебо-бақылаулы айқаспалы зерттеу; орта және үлкен жастағы 30 адам; тәулігіне 1000 мг, 6 апта | Қандағы NAD-пен байланысты пул артты. Бастапқы систолалық қысымы жоғары топтағы сигнал зерттеушілік сипатта; тамырлық оқиғалардың алдын алатынын дәлелдемейді әрі растауды қажет етеді. |
| Conze, NR | Артық салмағы бар ересектердегі рандомизацияланған 8 апталық сынақ; бірнеше NR дозасы | Тұтас қандағы NAD⁺ дозаға тәуелді өсті; зерттеу кезеңінде төзімділігі қолайлы болды. Бұл ұзақ мерзімді қауіпсіздікті немесе белгілі бір ағзаға пайданы дәлелдемейді. |
| Elhassan, NR | Жасы үлкен ерлердегі шағын зерттеу; 21 күннен кейін бұлшықет биопсиялары | Бұлшықет NAD метаболиттері және транскрипциялық/қабынулық белгілер өзгерді. Бұл молекулалық нәтижелер дене функциясы жақсарғанын дәлелдемейді. |
| Irie, NMN | Он дені сау ер адам; 100, 250 және 500 мг бір реттік дозалар | Қысқа мерзімді төзімділік пен NAM метаболиттері сипатталды. Шағын ашық зерттеу жоғары дозаларды ұзақ қабылдау қауіпсіздігін анықтамайды. |
| Yoshino, NMN | Предиабеті және артық салмағы бар менопаузадан кейінгі 25 әйел; тәулігіне 250 мг, 10 апта | Клэмппен өлшенген бұлшықеттегі инсулин ынталандырған глюкоза пайдалануы жақсарып, бұлшықет сигналдары өзгерді. Бұл белгілі топтағы физиологиялық нәтиже, диабеттің алдын алуын не ерлерде әмбебап әсерді дәлелдемейді. |
| Pencina, MIB-626 | Артық салмағы не семіздігі бар ≥45 жастағы 30 ересек; 1000 мг күніне екі рет, 28 күн | Қан айналымындағы NAD⁺ артты; топтар арасында LDL, диастолалық қысым және дене салмағы қысқа мерзімде өзгерді. Бұлшықет NAD⁺ елеулі өспеді; күш, аэробты мүмкіндік, шаршау, фосфокреатин қалпына келуі және инсулин сезімталдығы жақсармады. |
| Huang, Uthever/NMN | Тіркелген 66 адамның 62-сі аяқтады; тәулігіне 300 мг, 60 күн | Жасушалық NAD⁺/NADH және алты минуттық жүру қашықтығының топаралық өзгерістері статистикалық мәнді болмады ( және ). Топ ішіндегі өсімді плацебомен салыстырған әсер деп ұсынуға болмайды. |
Yoshino нәтижесі белгілі популяциядағы нақты тін функциясы өлшенгендіктен назар аударуға тұрарлық; оны «инсулинге төзімділікті емдеу дәлелденді» деп алмастыруға болмайды. Pencina керісінше пайдалы шекті көрсетеді: қандағы елеулі өсім бұлшықет NAD⁺ өсуімен не бірнеше бұлшықеттік және метаболизмдік нәтиженің жақсаруымен қатар жүрмеді. Қысқа әрі шағын сынақта кейбір жүрек-қантамыр көрсеткіштері жақсарғанымен, олардың клиникалық қайталануы мен себептік механизмі белгісіз. Huang әдіснамалық тұрғыдан айқын: биохимиялық көрсеткіш те, алты минуттық жүру де плацебомен салыстырылды, алайда топаралық дәлел болмады. Тек NMN тобындағы ішкі пайыздық өсімді қарау жалған оң қорытындыға әкеледі.
Қол жетімді матрицадағы NAD⁺ жоғарылауы адам қартаюын баяулататынын, нейродегенерацияны болдырмайтынын немесе өмірді ұзартатынын көрсететін дерек жоқ. Биопсиядағы тін жауабының өзі әсердің қанша бөлігі NR/NMN тікелей енуінен, қанша бөлігі NAM, NA және қайта синтезден болғанын ашпайды. Белгілі бір түрдің артықшылығын дәлелдеу үшін экспозиция, механизм және алдын ала таңдалған клиникалық нәтиже жеткілікті мерзімде, көптік салыстыруларды бақылаумен қатар көрсетілуі керек.
NAM түзілуі оның NAMPT арқылы жергілікті қосылуынан асқанда, ағынның бір бөлігі никотинамид-N-метилтрансфераза NNMT арқылы өтеді. реакциясында S-аденозилметионин (SAM) метил тобын NAM пиридин сақинасының азотына береді. Кейін альдегидоксидаза 2-PY және 4-PY сияқты пиридон туындыларын түзеді; олар бүйрек арқылы шығарылады. 1-MNA мен 2-PY өлшеу катаболизм бағытын растайды, бірақ метиломның зақымдануын не фолат тапшылығын өздігінен дәлелдемейді. Химияға қатысты нақтылау да маңызды: бастапқы мәтін NNMT шабуылын қате түрде «карбамоилпиридиний азотына» теліген; метилденетін — NAM пиридин азоты.
SAH гидролизденіп гомоцистеин түзуі мүмкін; гомоцистеин бауырдағы BHMT арқылы бетаинді пайдаланып немесе 5-метилтетрагидрофолат пен B₁₂ қатысатын MTR метионинсинтазасы арқылы қайта метилденеді. Бұл үдерістер метионин циклімен байланысты, бірақ жылдамдығы тамақтану күйіне, бауыр мен бүйрек қызметіне және қайтымды реакцияларға тәуелді. Демек, NNMT стехиометриясы капсула массасынан гомоцистеиннің қаншаға өсетінін есептеуге мүмкіндік бермейді және NR/NMN үшін әмбебап қауіпті доза шегін белгілемейді. Метилденген катаболиттері артқан зерттеулерде плазмалық гомоцистеин, мәнді матрицадағы SAM/SAH және клиникалық нәтижелер бөлек қаралуы керек; ондай өлшемдер болмаса, гипотеза ашық күйде қалады.
NR/NMN мөлшеріне салмақ бойынша 1:1 қатынаста бетаинді, сондай-ақ метилфолат пен B₁₂-ні міндетті түрде жоғары белгіленген дозада қосуды ұсыну берілген клиникалық сынақтардан туындамайды. Метил доноры осы жолға қатысқан күннің өзінде, тапшылық не жоғары гомоцистеин анықталмаған жағдайда алдын ала «буфер» қабылдаудың пайдасы дәлелденбейді. Практикалық бағалау адамның күйін, дәрілерін, бүйрек қызметі мен тамақтануын ескеруі тиіс; зертхана нәтижелерін түсіндіргенде гипергомоцистеинемияның бастапқы себептерін ұмытпау керек. SAM-ның биохимиялық рөлі мен субстрат схемасы және клиникалық әсер арасындағы айырмашылық S-аденозилметионин мен метилдену туралы материалда толық берілген.
Клиникада зерттелген дозалар — хаттамалардың сипаттамасы, қартаюға қарсы бекітілген «емдік аралық» емес. NR хлориді қанда өлшенген жауап берген ауыз арқылы қабылдау зерттеулерінде қолданылды. NMN-нің әдеттегі пероральді және микрокристалды түрлері зерттелген; осы дерек жиынтығында сублингвалды, липосомалық не ішекте еритін түрі адам тініне жеткізілуі немесе клиникалық нәтижесі жағынан басым екенін көрсететін мәлімет жоқ. Капсула құрылымына қарап бірінші өту метаболизмін, CD73-ті не SLC12A8-ді айналып өтеді деп тұжырымдауға болмайды. Егер өнім әзірлеушісі осындай кинетиканы мәлімдесе, дозасы бірдей салыстырмалы зерттеулер, бастапқы молекула мен метаболиттерді қадағалау, сынама алу уақыты және алдын ала белгіленген матрица қажет.
CLOCK:BMAL1 NAMPT-тың циркадтық реттелуіне қатысады, ал NAD⁺ пен SIRT1 кері байланыс арқылы жасуша сағаттарына әсер етеді. Nakahata және Ramsey еңбектері биологиялық механизмді көрсетеді, бірақ NAMPT барлық адамда дәл 07:00–09:00 аралығында шегіне жететінін немесе кешкі NR/NMN ұйқысыздық туғызатынын дәлелдемейді. Циркадтық фаза түрге, тінге, ұйқыға және тамақтану уақытына байланысты. Сондықтан жасуша не тышқан фазасын клиникалық қабылдауға «міндетті таңғы уақыт» деп көшіру әдіснамалық тұрғыдан қате; зерттеудегі қабылдау уақытын емдік заң емес, хаттама бөлігі ретінде сипаттау керек.
Апигенинді қоса флавоноидтардың CD38-ді тежеуі биохимиялық және жасушалық жүйелерде байқалған. Ауыз арқылы қабылданатын комбинация таңдау үшін қажетті компартменттегі қолжетімді бос концентрация, ерекшелік және клиникалық нәтиже туралы деректер керек; тазартылған ферменттің көрсеткіші апигенин дозасын NAD⁺ тапшылығын емдеуге айналдырмайды. CD38-ді нысана ретінде қарастыру мен флавоноид деректерінің шынайы шектерінің байланысы апигенин, CD38 және ұйқы туралы материалда көрсетілген. Сол сияқты ресвератрол/птеростильбеннің SIRT1-мен өзара әсері субстрат пен талдау шартына тәуелді: «сиртуинді белсендіру» адам өмірін ұзартуға тең емес. Уролитин A не PQQ-ді қатар қосу митохондрия сапасы мен биогенез жөніндегі зерттеу гипотезасы бола алады, бірақ дәлелденген «ұзақ өмір триадасы» немесе тұрақты көпкомпонентті хаттама емес.
Сынақтардағы зертханалық бақылау белгіленген мерзімде қауіпсіздік пен метаболиттерді бағалады, әр 12 апта сайын қайталанатын әмбебап курсты емес. NR немесе NMN зерттеу не жеке клиникалық жағдайда қарастырылса, бастапқы күйді, өнім құрамын, қатар қабылданатын заттарды, бауыр мен бүйрек функциясын тіркеп, өзгерістерді бірдей әдіс пен матрицада талдаған жөн. Қандағы жалпы NAD⁺ «биологиялық жасты» анықтайтын жеке валидтелген тест емес. Гомоцистеин жергілікті референс аралығы мен қауіп факторларын ескере отырып түсіндіріледі; бастапқы мәтіндегі тар «қалыпты» аралықты барлық зертхана мен популяцияға қолдануға болмайды.
| Салыстыру сұрағы | NR | NMN | Нақты жауап беру үшін не қажет |
|---|---|---|---|
| Жасуша бетінде болатын химиялық ауысу | Рибонуклеозид; сипатталған нуклеозид тасымалдағыштарымен кіруі мүмкін | Фосфорланған молекула; көптеген модельде дефосфорланады, тікелей тасымалы талқылануда | Адамның нақты тінінде бастапқы молекула мен фосфатты изотоппен қадағалау |
| Жасушаішілік жол | NRK1/2 → NMN → NMNAT → NAD⁺ | Интакт кірсе: NMNAT; дефосфорланса: NRK → NMNAT | Компартмент концентрациясы, фермент белсенділігі және ағын; бір жалпы NAD⁺ емес |
| Адамдағы дәлел базасы | NAD маркерлері жоғарылаған; кейбір шағын физиологиялық сигнал | NAD маркерлері жоғарылаған; бір тіндік клэмп нәтижесі және бірнеше теріс функционалдық нәтиже | Алдын ала белгіленген клиникалық соңғы нүктесі бар тікелей рандомизацияланған салыстыру |
| ГЭБ, бұлшықет, «қартаюға қарсы» | Келтірілген EV зерттеуі интакт NR-дің адам миына тікелей жеткенін дәлелдемейді | Әмбебап өткізбейтіндік те, нақты форманың артықшылығы да анықталмаған | Тінге тән фармакокинетика, қауіпсіз мерзім және клиникалық қайталау |
Бұл — ұсынылған әдебиет корпусына жасалған баяндау сипатындағы редакциялық жинақ, жүйелі шолу немесе ресми GRADE бағасы емес. 2026 жылғы 4 қазанда қорытындының негізгі шектеріне әсер ететін бастапқы еңбектер арнайы тексерілді: NMN-нің жасушалық өңделуі және NRK1, ауыз және көктамыр ішілік изотоп жолдары, Vreones жұмысындағы сынама матрицасы, сондай-ақ Pencina мен Huang клиникалық сынақтарының топаралық нәтижелері. Қалған дереккөздер бастапқы библиография аясында қолданылды; жаңа толық іздеу, тәуелсіз рецензия немесе әр сілтемені қайта тексеру жасалды деп мәлімделмейді. Түрлер, дозалар, экспозиция, химиялық формалар, сынаманы өңдеу, тіндер мен бақылау ұзақтығы арасындағы айырмашылықтар елеулі белгісіздік тудырады. Кейбір соңғы нүктелердің теріс болуы басқа популяцияда қандай да бір әсер мүлде мүмкін емес екенін дәлелдемейді, бірақ пайданы әлдеқашан анықталған деп жариялауға жол бермейді.
NR мен NMN айырмашылығы ең алдымен жасушадан тыс гидролиз, тасымал және NAD⁺ жергілікті синтезі туралы тексеруге болатын гипотезалар ұсынады. Екі түр де адамдардағы қолжетімді NAD метаболизмі маркерлерін арттыруы мүмкін, бірақ бұл маркерлер әзірге әмбебап үздік прекурсорды таңдауға не қартаюдың алдын алу туралы қорытындыға жеткіліксіз. Ең мазмұнды келесі зерттеулер таңбаланған ағынды, нақты тінді және алдын ала белгіленген клиникалық маңызды нәтижені қатар өлшеп, теріс нәтижелерді оңдарымен бірге көрсетуі керек.
Бұл — 29 жарияланымнан тұратын дереккөздер жинағына негізделген NR, NMN және NAD⁺ алмасуы жөніндегі баяндау шолуы. 2026 жылғы 4 қазандағы редакциялық нұсқада фармакокинетикалық және клиникалық нәтижелерді түсіндірудегі негізгі қайшылықтар нысаналы түрде тексерілді. Алдын ала белгіленген хаттама бойынша толық іздеу, мета-талдау және әр жұмыстың ығысу қаупін ресми бағалау жүргізілген жоқ.
Прекурсорлардың жасушада айналу жолдары, қандағы NAD⁺ өлшемдері, жекелеген тіндердегі деңгейлер және клиникалық нәтижелер бөлек қаралады. Плазмадан бөлінген везикулалар туралы деректер мидағы метаболитті тікелей өлшеу емес. Нәтиже химиялық түрге, енгізу жолына, ұзақтығына, популяцияға және соңғы нүктеге тәуелді; биомаркердің өзгеруі функция жақсарғанын не ұзақ мерзімді пайда болғанын дәлелдемейді.
NMN құрамындағы фосфат мембранадан пассивті өтуді қиындатады. Бірқатар жасуша модельдерінде ол алдымен сыртта NR-ге дейін дефосфорланады; бұл жолдың адам тіндерінің бәріне ортақ екені және тікелей тасымал үлесі анықталмаған.
Жоқ. Тұтас қан, бұлшықет биопсиясы және ми — бөлек матрицалар. NMN туралы бір зерттеуде айналымдағы NAD⁺ елеулі өссе де, бұлшықет NAD⁺-ы мен функционалдық тесттер мәнді жақсармады.
Бірдей популяция, доза, тін өлшемдері және клиникалық нәтиже қолданылған жеткілікті тікелей салыстыру жоқ. Бөлек зерттеулердегі биомаркерлерге қарап таңдау жасауға әлі ерте.
NNMT никотинамидті метилдегенде SAM жұмсайды, бірақ берілген сынақтар бетаиннің NR/NMN-ге белгіленген қатынасын клиникалық тұрғыдан қажет екенін дәлелдемейді.