
Апигенин: ГАМҚ-рецепторлары, CD38, NAD⁺ және ұйқы
Апигениннің сіңуі мен метаболизмі, ГАМҚ-рецепторларына біркелкі емес әсері және CD38 мен түймедақ зерттеулері ұйқы, мазасыздық, NAD⁺ және қауіпсіздік туралы нені көрсетеді.
Апигениннің сіңуі мен метаболизмі, ГАМҚ-рецепторларына біркелкі емес әсері және CD38 мен түймедақ зерттеулері ұйқы, мазасыздық, NAD⁺ және қауіпсіздік туралы нені көрсетеді.
Көпшілік апигенинмен оның атауын білмей тұрып танысады: ол түймедақта, ақжелкенде және балдыркөкте болады. Алайда бір кесе тұнба, өсімдік тағамы, стандартталған сығынды және тазартылған флавон капсуласы ағзаға әртүрлі әсер етеді. Жапсырмадағы мөлшер мен мидағы әрекеттің арасында еру, ішек пен бауырдағы метаболизм, тіндерге таралу және нақты нысанаға жету сатылары бар. Осы жолды қарастыру рецепторлар мен ферменттер жөніндегі қызықты нәтижелердің неліктен әзірге ұйқысыздыққа немесе қартаюға қарсы дәлелденген құралға айналмағанын түсіндіреді.
Апигениннің бірнеше әсер бағыты тәжірибеде зерттелген: ГАМҚ-рецепторларымен өзара әрекеттесу, NAD⁺ жұмсайтын CD38 ферментінің белсенділігін тежеу және қабыну сигналдарын өзгерту. Бұлар маңызды физиологиялық үдерістермен байланысты, бірақ әрқайсысына адамдағы жеке дәлел қажет. Сынауықтағы фермент белсенділігінің төмендеуі әдеттегі ауыз арқылы қабылданатын доза жасушада қажетті концентрацияны туғызады дегенді білдірмейді. Төменде молекулалық механизмдер тәжірибе жағдайларымен бірге, ал түймедақтың адамдағы зерттеулері клиникалық нәтижелері мен шектеулері тұрғысынан қарастырылады.
Апигенин — формуласы C₁₅H₁₀O₅, молярлық массасы 270,24 г/моль болатын 4′,5,7-тригидроксифлавон. Оның C₆–C₃–C₆ қаңқасында A және B деген екі ароматты сақина мен оларды қосатын, құрамында оттек бар C сақинасы бар. C сақинасында C2=C3 қос байланысы және C4 тұсында карбонил тобы орналасады; гидроксилдер C5, C7 және C4′ тұстарында болады. Бұл құрылым электрон тығыздығын, сутектік байланыстарды және ақуыздармен әрекеттесу мүмкіндігін анықтайды, бірақ өздігінен CD38-ге немесе белгілі бір рецептор түріне жоғары туыстықты дәлелдемейді.
Қосарланған жүйе хромон өзегін салыстырмалы түрде қатты етеді, дегенмен B сақинасының бұрылуы мен байланысқан кешеннің геометриясы ортаға тәуелді. Сондықтан молекуланың таңдамалылығын өзгермейтін «мінсіз жазықтық» туралы тұжырымнан шығаруға болмайды. Фенолдық OH топтары еріткішпен әрекеттеседі әрі метаболизмдік конъюгация жүретін орындар болады. Байланысуға немесе антиоксиданттық реакцияға химиялық қабілет клиникалық антиоксиданттық әсерге тең емес: концентрация, орта және бәсекелес реакциялар маңызды.
Тазартылған агликон үшін суда нашар еруі елеулі мәселе. Физика-химиялық қасиеттер туралы ертеректегі жұмыста октанол мен су арасындағы таралу коэффициенті log K = 2,87 шамасына сәйкес келді, ал ерігіштік зерттелген еріткіштер мен беттік-белсенді орталар арасында қатты өзгерді. Бұл жеткізу жүйелеріне қызығушылықты түсіндіреді, бірақ кез келген өнімнің әмбебап ерігіштігін немесе барлық препараттың бір BCS класын белгілемейді. Биофармацевтикалық жіктеу белгілі жағдайдағы ерігіштік пен өткізгіштікті бағалауды талап етеді; «II/IV» белгісі мұндай бағалауды алмастырмайды.
Өсімдіктерде апигенин жиі қант қалдықтарымен байланысады. Апигетрин — апигенин-7-O-глюкозид, ал апиинде сол орынға апиозилглюкоза фрагменті жалғанған. Осы гликозидтердің айырмашылығы гидролазаларға қолжетімділікке және ішекте агликонның босайтын орнына әсер етеді. Сондықтан ақжелкендегі, түймедақ сығындысындағы және тазартылған қоспадағы апигенин өзегінің бірдей мөлшері жүйелік экспозицияның бірдей уақытына немесе шамасына кепіл болмайды.
Өсімдік молекуласы тіндерге қолжетімді болуы үшін алдымен тағам матрицасынан босап, көптеген O-гликозидтер жағдайында қант бөлігінен ажырауы қажет. Бұған қылшықты жиектің гидролазалары, соның ішінде лактаза-флоридзин-гидролаза және ішек микробиотасы қатысуы мүмкін. Цитозольдік β-глюкозидаза жасуша ішіндегі қолайлы субстраттарды ыдырата алады, бірақ ферменттің болуы нақты гликозидтің мембранадан қалай өткенін түсіндірмейді. Апииннің қосымша қант қалдығы гидролизді күрделендіреді, сондықтан өзгерістердің бір бөлігі ішектің дисталдық бөлімдеріне ығысады.
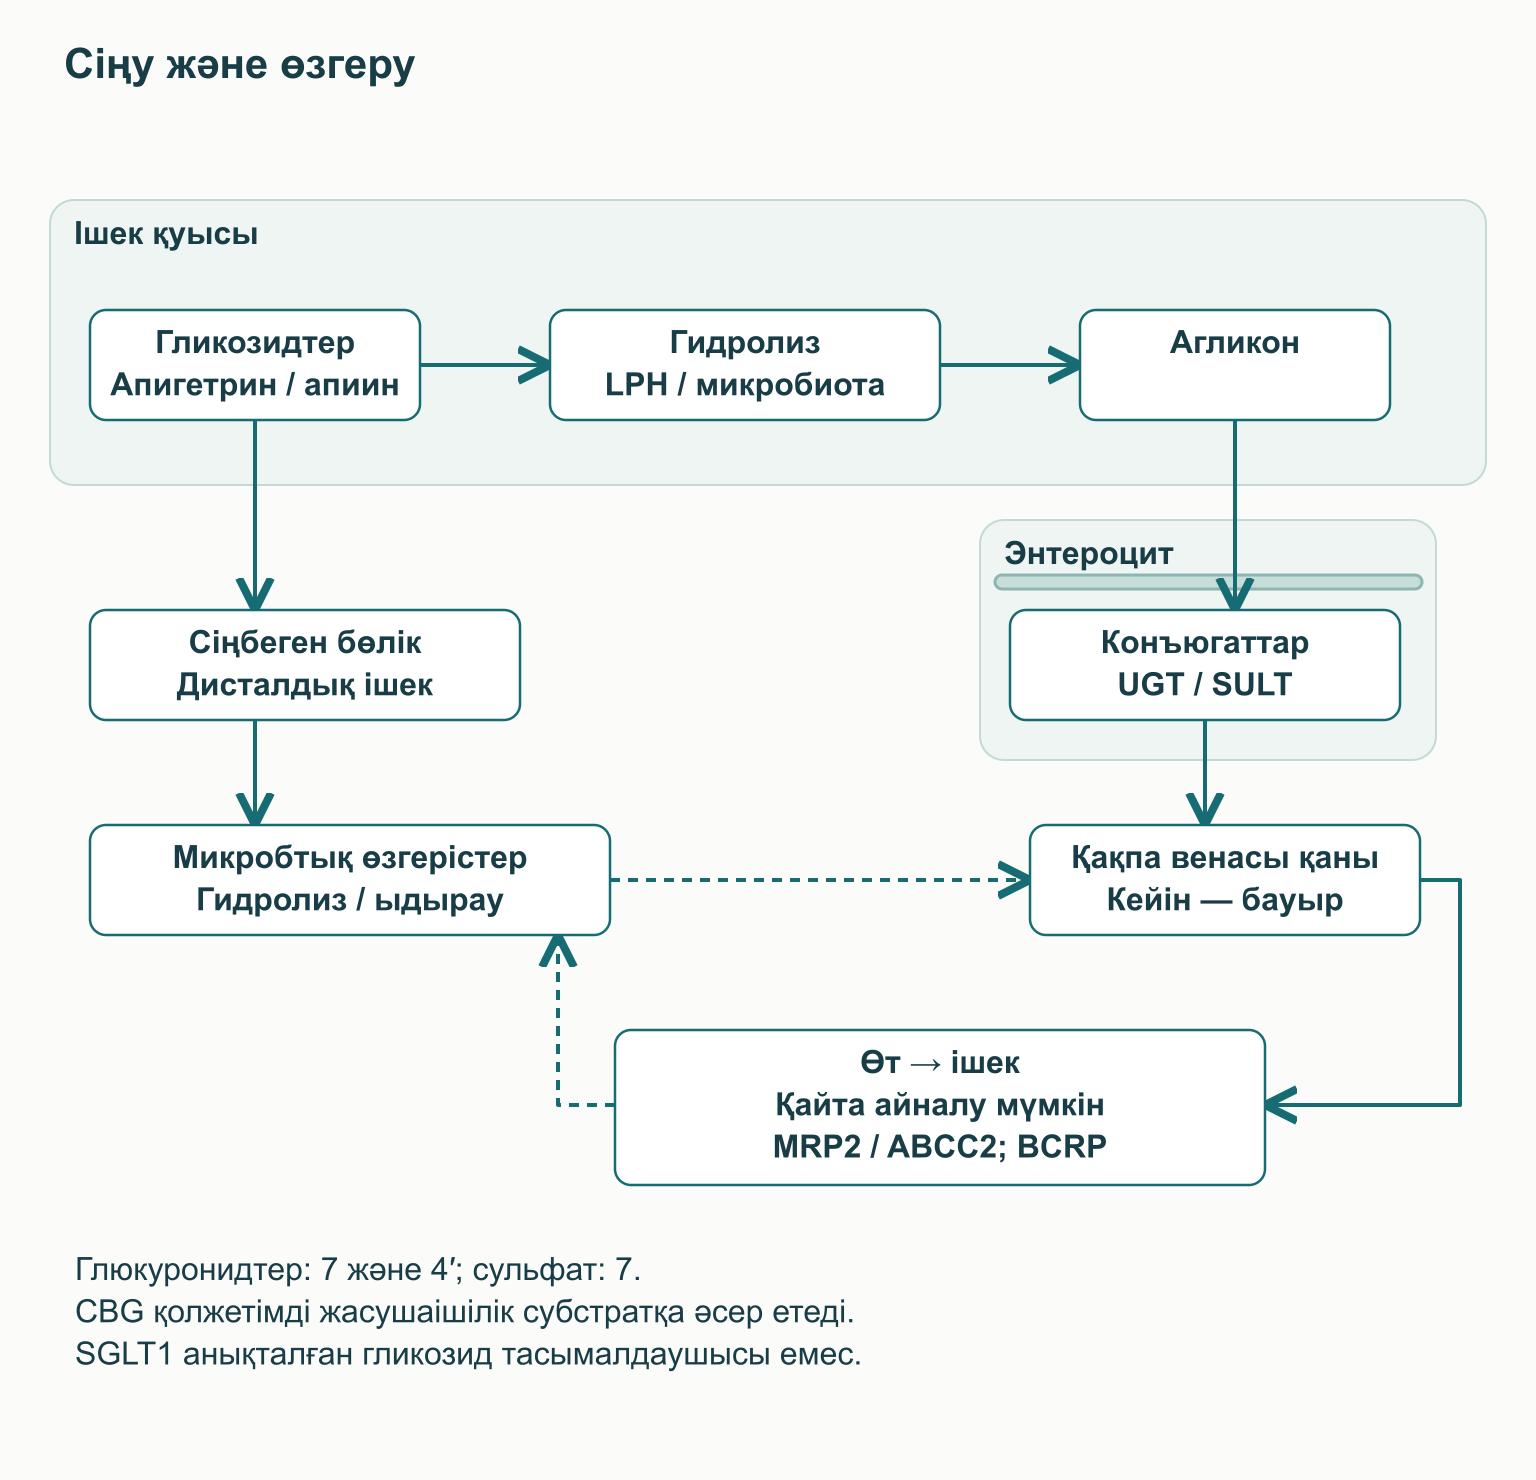
SGLT1 флавоноид гликозидтерін глюкозамен бірге тасымалдайды деген танымал сызба тым кесімді. Адамның SGLT1 ақуызы экспрессияланған ооциттердегі тәжірибелерде зерттелген гликозидтер тасымал тогын туғызбады, бірақ кейбірі глюкоза сіңірілуін тежеді. Бұл тірі адамдағы сіңу зерттеуі емес, тасымал моделі, дегенмен «SGLT1 → апигенин» деген тікелей бағытты анықталған жол деп есептеуге болмайтынын көрсетеді. Ең сенімді тұжырым — сіңу гликозид құрылымына, гидролизге және ішек ортасының қасиеттеріне тәуелді.
Энтероцитке түскен соң агликон глюкурондалады және сульфатталады, ал кейінгі метаболизм бауырда жүреді. Дені сау ерлерде апигенин-4′-глюкуронид, апигенин-7-глюкуронид және апигенин-7-сульфат анықталған. UGT және SULT тиісті ферменттер топтарын білдіреді; жеке изоформалардың үлесі тінге және тәжірибе жағдайына тәуелді. Конъюгацияланған метаболитті бос апигенинмен фармакологиялық тұрғыдан автоматты түрде теңестіруге болмайды, өйткені мембрана өткізгіштігі, ақуыздармен байланысуы және нысанаға жетуі өзгереді.
Конъюгаттардың бір бөлігі ішек пен бауырдың тасымал жүйелерімен шығарылады; өт арқылы шығарылу және одан кейінгі бактериялық гидролиз қайта сіңуге мүмкіндік беруі мүмкін. Бұл жолдарға MRP2/ABCC2 және BCRP секілді сыртқа шығаратын ақуыздар қатысады, бірақ бір жасушалық модельдегі салыстырмалы үлесті барлық қоспа түріне көшіруге болмайды. Микробтық өзгерістер флавон қаңқасын қарапайым фенолдық қосылыстарға дейін де ыдыратуы мүмкін. Сондықтан таңбаның немесе метаболиттердің ұзақ анықталуы белсенді агликонның сонша уақыт сақталуын дәлелдемейді; барлық өнім үшін адамдағы әмбебап 12–24 сағаттық жартылай шығарылу мерзімі белгіленбеген.
Дені сау 11 ересекке дене салмағының әр килограмына 2 г есебімен бланширленген ақжелкен берілген тағамдық тәжірибе көрнекі мысал болады. Орташа жүктеме 65,8 мкмоль, шамамен 18 мг апигенин болды; өлшенген плазмалық шың 7,2 ± 1,3 сағаттан кейін 127 ± 81 нмоль/л-ге жетті. Тәуліктік несептен енгізілген мөлшердің 0,22 ± 0,16%-ы анықталды; бұл абсолюттік биожетімділік емес, өйткені барлық метаболит пен шығарылу жолын қамтымайды. Үлкен тағам көлемі кинетиканы зерттеу үшін қолданылған, ақжелкенді килограмдап жеуге ұсыныс немесе кез келген капсуланың моделі емес.
Ерлердегі басқа метаболизм зерттеуі де заттың түрі мен тағам көзі қанда айналатын қосылыстар бейінін өзгертетінін көрсетті. Алғашқы бөлігіне төрт адам қатысты, кейінгі қайталама тағам қабылдаулар өзгергіштікті зерттеді; қабылдаулар санын тәуелсіз адамдар саны деп есептеуге болмайды. Бұл жұмыстар сіңуді талқылауға адамдағы негіз береді, бірақ мидағы бос апигенин концентрациясын көрсетпейді. Оларды микромолярлық жасушалық тәжірибелермен салыстырғанда жалпы өлшенген экспозицияны, байланыспаған фракцияны және тіндегі жергілікті концентрацияны ажырату қажет.
ГАМҚ көптеген нейрондық желілердегі жылдам тежелудің негізгі медиаторы, ал GABA_A рецепторы — пентамерлік иондық арна. Жиі кездесетін синапстық түрлерде екі α, екі β және бір γ суббірлігі болады, бірақ олардың жиынтығы ми бөлімдеріне қарай өзгереді. ГАМҚ жасушадан тыс β⁺/α⁻ интерфейсіне, ал классикалық бензодиазепин орны α⁺/γ⁻ интерфейсіне сәйкес келеді. Бұлар бір ақуыз кешеніндегі әртүрлі орындар: аллостериялық лиганд ГАМҚ-ны негізгі байланысу орнында алмастырмай, арнаның оған жауабын өзгерте алады.
Ашық арна негізінен аниондарды өткізеді, ал ГАМҚ әсерін хлордың бар болуы ғана емес, электрохимиялық градиент анықтайды. Жетілген нейрондарда жауап әдетте гиперполяризация және/немесе қоздырғыш токты шунттау арқылы тежелуді қолдайды. Жасуша ішіндегі Cl⁻ мөлшері басқаша болса, мысалы дамудың кейбір сатыларында немесе патологиялық жағдайда, мембраналық потенциал өзгерісінің бағыты да өзгеше болуы мүмкін. Демек, Cl⁻ кіруі мен гиперполяризация әр жасушада міндетті бірізділік құрмайды.
Viola-ның ерте зерттеуінде апигенин орталық бензодиазепин орнының лигандысын Ki шамамен 4 мкмоль/л деңгейінде ығыстырды. Тышқандарда белгілі дозаларда айқын қимыл өзгерісінсіз мазасыздықты азайтатын әрекет ретінде түсіндірілген мінез-құлық байқалды; он есе жоғары дозада седация белгілері анықталды. Бұл рецептор жүйесімен әрекеттесуге қызығушылықты қолдайды, бірақ адам миындағы тиімді концентрацияны не жағымсыз әсерлердің жоқтығын белгілемейді. Ki нақты тәжірибедегі байланысуды сипаттайды, ауыз арқылы қабылдау дозасы емес.
Кейінгі функционалдық зерттеулер оң модуляцияның біртұтас бейнесін бермейді. Avallone тәжірибелерінде апигенин нейрон өсінділеріндегі ГАМҚ белсендірген токтарды азайтты; Losi жұмысында рекомбинантты α1β2γ2 рецепторының токтары төмендеп, қыртыстық жасушалардағы тежеу берілісі өзгерді. Losi сондай-ақ NMDA жауаптарының IC₅₀ шамамен 10 мкмоль/л кезінде тежелгенін және AMPA жауаптарына әсері әлдеқайда аз болғанын көрсетті. Бұлар бірнеше нысана бар екенін көрсететін жасушалық нәтижелер, ГАМҚ-ны таңдаулы күшейту арқылы адам мазасыздығын клиникалық емдеу емес.
Басқа рекомбинантты тәжірибеде 1 мкмоль/л апигенин диазепамның ГАМҚ жауабын оң модуляциялауын күшейтті, әрі нәтиже заттар үйлесіміне тәуелді болды. Бұрыннан бар бензодиазепин әсерін күшейту апигениннің дербес оң әсеріне тең емес. Тәжірибелер айырмашылығы рецептор құрамын, концентрацияны, экспрессия жүйесін және бастапқы белсенділікті көрсетуі мүмкін. Практикада бұл «синергия» үшін үйде седативті дәрілермен араластыруға қарсы дәлел.
| α-суббірлік түрі | Рецептор физиологиясы туралы белгілі жайт | Апигенин туралы айтуға болмайтын тұжырым |
|---|---|---|
| α1 | Бензодиазепиндердің бірқатар седативті және басқа әсерлеріне қатысады | α1-ге әлсіз әсер ұйқышылдықты сенімді түрде жоққа шығарады деу |
| α2 | Тәжірибелік фармакологияда мазасыздықты азайтудың кейбір құрамдарымен байланысты | Апигенин адамда α2-ге таңдамалы деу |
| α3 | Тежеу берілісіне және кейбір модуляторлар әсеріне үлес қосады | Апигениннің жеке пайдалы «орташа» белсенділігі анықталған деу |
| α5 | Кейбір желілер, соның ішінде гиппокамп үдерістері үшін маңызды | α5-ке әсер етпеу жадты сақтауға кепіл деу |
Рецептор түрлерінің қызметін ажырату дәрі әзірлеуге пайдалы, бірақ өсімдік молекуласын таңдамалы препаратқа айналдырмайды. Апигенинді α2-ні артық көретін дәлелденген жартылай оң аллостериялық модулятор деп сипаттауға дерек жеткіліксіз. Мұндай атаудан адамда амнезия, бұлшықет босаңсуы, толеранттылық немесе тоқтату синдромы болмайды деген қорытынды шығаруға тіпті болмайды. Бұл клиникалық қасиеттер түрі, дозасы және ұзақтығы белгілі жеке зерттеулерді қажет етеді.
Ұйықтау циркадтық сигналдардың, жиналған ұйқы қажеттілігінің және сергектік жүйелерінің өзара әрекетіне тәуелді. Преоптикалық аймақтардағы ГАМҚ бар нейрондар кейбір сергектік орталықтарын тежеуге қатысады, бірақ заттың рецепторға байланысуы сол желілерге таңдамалы әрекетін көрсетпейді. Шамамен 0,5–4 Гц дельта-белсенділік баяу толқынды үдерістерге тән; 4–8 Гц шамасындағы тета диапазоны бірнеше күйде кездеседі және өздігінен қалпына келтіретін ұйқының белгісі емес. Сапалы адам зерттеулерінде апигениннің N3-ті арттыратыны, REM-ді белгілі үлесте сақтайтыны немесе осы ырғақтар арқылы жадты жақсартатыны көрсетілмеген.
Ұйқысы бұзылған егеуқұйрықтар тәжірибесінде 300 мг/кг түймедақ сығындысы ұйқыға кету уақытын қысқартты, бірақ сергектіктің, NREM немесе REM-нің жалпы ұзақтығын өзгертпеді. Сығындыда бірнеше зат бар, ал жануарға берілген мөлшерді адамға ұсынылатын таза апигенин миллиграмына тікелей айналдыруға болмайды. Бұл адамдағы терең N3 сатысының артуын немесе ұйқы құрылымының «қалыпқа келуін» дәлелдемейді. Глимфалық үдерістер мен түнгі гормон секрециясын талқылау да тұнба не қоспа миды тазартуды және тіндердің қалпына келуін күшейтетінін көрсетпейді.
Созылмалы бастапқы ұйқысыздықтағы ең тікелей плацебо-бақыланатын сынаққа 34 ересек қатысты. Олар 28 күн бойы тәулігіне екі рет 270 мг стандартталған түймедақ сығындысын қабылдады. Жалпы ұйқы ұзақтығы, ұйқы тиімділігі және негізгі түнгі көрсеткіштер бойынша мәнді артықшылық анықталмады. Пилоттық шағын іріктеме белгісіздік қалдырады, бірақ нәтиже сенімді ұйықтататын әсерге уәдені қолдамайды; оның үстіне жеке апигенин капсуласын тексермейді.
Мазасыздық үшін басқа клиникалық бағыт бар. Генерализацияланған мазасыздық бұзылысы бар 57 адам қатысқан сегіз апталық шағын зерттеуде түймедақ сығындысы плацебомен салыстырылды; доза хаттама ішінде арттырылды, таза флавон мөлшері ретінде белгіленген жоқ. Жұмыс мазасыздық белгілерінің азаюы мүмкін екенін көрсетті, бірақ қоспаның қай заты нәтиже бергенін анықтай алмайды. Мазасыздық симптомдары мен ұйқы көрсеткіштері әртүрлі, сондықтан бір шкаладағы оң нәтижені ұйқы сатыларына немесе қайталануды болдырмауға көшіруге болмайды.
Ұзақ зерттеу алдымен 179 пациентті тәулігіне 1500 мг түймедақ сығындысы қолданылған 12 апталық ашық кезеңге қосты. Кейін жауап берген 93 қатысушы сығындыны жалғастыру немесе 26 апта плацебо алу топтарына бөлінді. Қайталану емді жалғастырған 46 адамның 7-еуінде және плацебо алған 47 адамның 12-сінде болды; қауіптер қатынасы 0,52 еді, бірақ 95% аралығы 0,20–1,33 әсер жоқтығын қамтыды. Негізгі нәтиже статистикалық мәнді болмады, дегенмен кейбір симптом көрсеткіштерінде айырмашылық болды; бұрын жауап бергендерді іріктеу қорытындыны мазасыздығы бар барлық адамға қолдануды шектейді.
| Зерттеу | Топ, препарат түрі және ұзақтық | Практикалық түсіндіру |
|---|---|---|
| Ұйқысыздық пилоты | 34 ересек; түймедақ сығындысы 270 мг тәулігіне екі рет, 28 күн | Негізгі ұйқы көрсеткіштеріндегі артықшылық көрсетілмеді |
| Мазасыздықтың алғашқы сынағы | 57 пациент; сығынды дозасын арттыру, 8 апта | Қоспаның ықтимал симптомдық әсері; таза апигенин сынағы емес |
| Мазасыздық емін жалғастыру | Ашық кезеңнен кейін жауап берген 93 адам; 1500 мг сығынды/тәулік, тағы 26 апта | Қайталануды болдырмаудың негізгі нәтижесі статистикалық мәнділікке жетпеді |
Түймедақ сығындысының миллиграмын апигенин миллиграмы деп түсінуге болмайды. Стандарттау да әртүрлі қоспаларды өзара алмастырылатын етпейді: құрам, экстракция тәсілі және аналитикалық бақылау маңызды. Созылмалы ұйқысыздықта бастапқы міндет — себептерін бағалау және емді таңдау; көпқұрамды когнитивтік-мінез-құлықтық терапия кәсіби нұсқаулықта күшті ұсынылған. Тұнба кешкі әдеттің бөлігі бола алады, бірақ тұрақты ұйқысыздық, айқын күндізгі ұйқышылдық немесе ұйқыдағы тыныс бұзылысы күдігі кезінде көмекті кешіктірмеуі керек.
NAD⁺ екі түбегейлі әртүрлі қызмет атқарады. Тотығу-тотықсыздану реакцияларында ол электрон қабылдап NADH-қа айналады, кейін қайта тотығады; сиртуиндер, PARP және кейбір басқа ферменттер реакцияларында молекула субстрат ретінде жұмсалады. Сондықтан NAD⁺ жалпы қоры, NAD⁺/NADH қатынасы және жұмсалу жылдамдығы байланысты, бірақ бірдей көрсеткіштер емес. Оларды тінде өлшеу ядро, цитозоль немесе митохондрия матриксіндегі концентрацияны автоматты түрде көрсетпейді.
CD38 NAD⁺-гликогидролаза және ADP-рибозилциклаза белсенділігіне ие. Гидролизді NAD⁺ + H₂O → никотинамид + ADP-рибоза деп жазуға болады; циклдену никотинамид пен циклдік ADP-рибозаны, cADPR-ді түзеді. cADPR кальций сигналдарына қатысады, сондықтан CD38 жай ғана «энергияны зиянды бұзушы» емес. Өнімдердің арақатынасы реакция жағдайына тәуелді: бір cADPR үшін әрдайым жүз NAD⁺ жұмсалады деген тұжырым әмбебап стехиометрия болмайды.
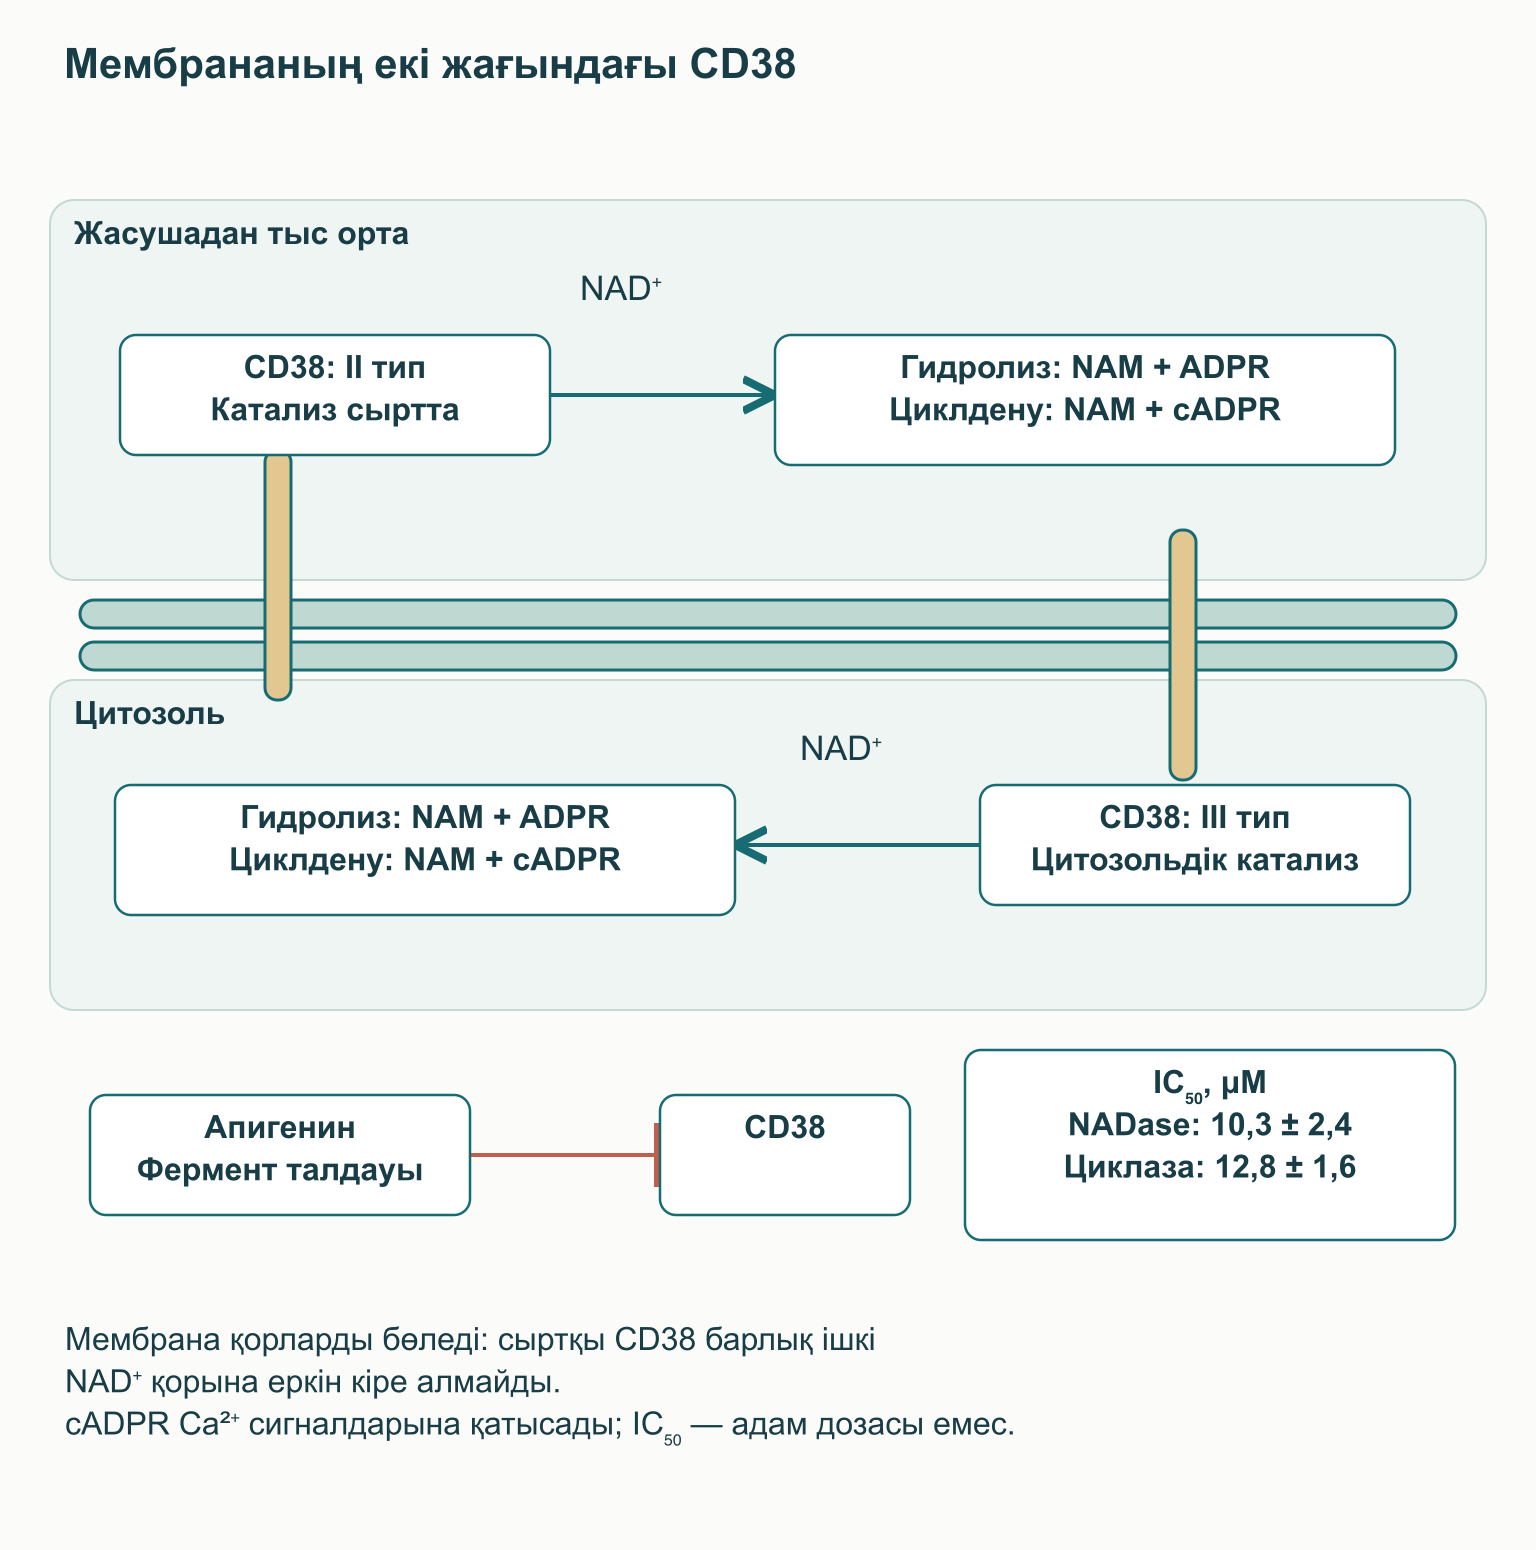
Жасушалық нәтижені түсінуде ферменттің бағдарлануы маңызды. Жиі кездесетін II типті CD38-дің каталитикалық бөлігі жасуша сыртына немесе тиісті мембраналық компартмент қуысына, ал III типте цитозольге қарайды. Демек сыртқы ферментті өткізбейтін мембрана арқылы барлық ішкі NAD⁺-ты еркін жұтатын етіп салуға болмайды. Сыртқы ізашарлар қолжетімділігінің өзгеруі, ақуыздың ішкі түрлері және тіннің жасушааралық ұйымдасуы әсерді түсіндіруге көмектеседі, бірақ жеке деректі қажет етеді.
Тышқан модельдерінде CD38 жасқа байланысты NAD⁺ азаюына және SIRT3-пен байланысты митохондриялық өзгерістерге елеулі үлес қосты. Басқа тәжірибелер сенесцентті жасушалардың сигналдары тіндердегі CD38-оң макрофагтар саны мен белсенділігін арттыра алатынын көрсетті. Бұл қабыну ортасын NAD⁺ жұмсалуымен байланыстырады, бүкіл ағзаның бір ғана қартаю механизмін дәлелдемейді. Өзгеріс шамасы тінге, модельге және өлшеу тәсіліне тәуелді; әр қартайған адамда NAD⁺ 50–80% азаяды деген әмбебап нәтиже анықталмаған.
Апигенин шынымен CD38 тежегіші ретінде зерттелді, бірақ белсенділігі микромолярлық болды. Escande жұмысында IC₅₀ NADase белсенділігі үшін 10,3 ± 2,4 мкмоль/л, циклазалық белсенділік үшін 12,8 ± 1,6 мкмоль/л болды. Бұл бастапқы материалдың танымал сипаттамаларындағы 100–300 нмоль/л ауқымынан шамамен екі реттік дәрежеге жоғары. Оның үстіне IC₅₀ субстрат концентрациясы мен талдау жағдайына тәуелді; ол байланысу тұрақтысына, қандағы концентрацияға немесе қоспаның қауіпсіз дозасына тең емес.
Жасушалық тәжірибелерден кейін авторлар майы көп тағам алған 12 тышқанды екі топқа бөліп зерттеді. Апигенинді жеті күн бойы 100 мг/кг дозада құрсақ қуысына енгізіп, бауырдағы NAD⁺, ақуыз ацетилденуі және метаболизм көрсеткіштерінің өзгерісін байқады. Әдеттегі ішектік сіңуді айналып өтетін қысқа араласу адамға ауыз арқылы қабылдау хаттамасын белгілемейді және жасқа байланысты нейродегенерацияның алдын алуды дәлелдемейді. 78c деп белгіленген күштірек тәжірибелік CD38 тежегіші туралы дерек басқа молекулаға қатысты; оның нәтижесін апигенинге телуге болмайды.
SIRT1 және SIRT3 — NAD⁺-тәуелді деацетилазалар, бірақ әртүрлі жасушалық ортада әрекет етеді. SIRT1 негізінен ядролық және цитозольдік үдерістерге, SIRT3 митохондрия матриксінің бірқатар ақуызына қатысады. Белгілі жағдайда NAD⁺ қолжетімділігінің өсуі олардың реакцияларын қолдай алады, алайда белсенділік фермент мөлшеріне, субстрат күйіне, өнімдерге және басқа реттегіштерге де тәуелді. Сондықтан «NAD⁺ көбейді → барлық сиртуин қосылды → жасуша жасарды» тізбегі маңызды шектеулерді жоғалтады.
Реттеуші байланыстарды нақты ақуыздар мен реакциялар арқылы түсіну оңайырақ. Кестеде жасуша биологиясын түсіндіретін буындар келтірілген; ол апигенин қабылдаудың адамдағы әсерін дәлелдемейді. Бір реакцияның күшеюі де, NAD⁺ қолжетімділігінің өзі де клиникалық жақсаруға кепіл болмайды.
| Буын | Реакция немесе нысаналар | Мағынасы және шектеуі |
|---|---|---|
| SIRT1 және аутофагия | FOXO, p53; Atg5, Atg7, Atg8 | Ацетилдену мен стреске жауап бағдарламаларының өзгеруі жасушаға және жағдайға тәуелді |
| SIRT3 және IDH2 | Изоцитрат + NADP⁺ → α-кетоглутарат + CO₂ + NADPH + H⁺ | Митохондриялық NADPH көзі, қоспаның дәлелденген әсері емес |
| Глутатионредуктаза | GSSG + NADPH + H⁺ → 2 GSH + NADP⁺ | Глутатионды қалпына келтіру; H₂O₂ жою үшін тиісті ферменттер қажет |
| SIRT3 және тыныс тізбегі | I кешені, соның ішінде NDUFA9; энергия алмасуы | Митохондриялық ақуыздардың реттелуі адамда ATP артуына кепіл болмайды |
Субстратқа тәуелділікті түсіндіруге қарапайым кинетикалық жуықтау пайдалы: v = Vmax × [NAD⁺] / (Km + [NAD⁺]). Мұнда v — реакция жылдамдығы, Vmax — қаныққандағы шек, Km — нақты фермент–субстрат жүйесінің параметрі. Формула NAD⁺-тың бір «қалыпты» диапазонында қосылатын тетікті емес, біртіндеп қанығуды көрсетеді. Нақты сиртуин реакциялары бұдан күрделі, сондықтан бір Km диапазонын пациенттегі NAD⁺ тапшылығының әмбебап талдауы ретінде қолдануға болмайды.
SIRT1-дің белгілі серіктестерінің бірі — энергия күйі сигналдарын метаболизм гендерінің транскрипциясымен байланыстыратын PGC-1α коактиваторы. Тінге байланысты оның реттелуі субстрат тотығуына, глюконеогенезге немесе митохондриялық биогенез бағдарламаларына қатысты. PGC-1α ядролық тыныс факторлары NRF1 және тарихи NRF2 деп аталған GABP-мен, сондай-ақ митохондриялық ДНҚ қызметіне қажет TFAM реттелуімен әрекеттеседі. Бұл NRF2-ні антиоксиданттық NFE2L2 факторынан ажырату керек; бірдей қысқарту оларды бір ақуыз етпейді.
SIRT1 FOXO факторларының, p53, аутофагия компоненттерінің және NF-κB кешеніндегі p65 суббірлігінің ацетилденуін де өзгертеді. Бұл стресс жауаптарын қайта бөлуі мүмкін, бірақ нәтиже бағыты жасуша мен міндетке тәуелді: апоптозды тежеу, мысалы, кез келген жағдайда пайдалы емес. p65 үшін Lys310 деацетилденуі және Ser536 фосфорлануының өзгеруі бөлек химиялық оқиғалар. Оларды бір белгісіз «апигенин қабынуды сөндіреді» бағытына біріктіруге болмайды, себебі жолдары мен дәлелдері өзгеше.
Митохондрияда SIRT3 MnSOD/SOD2, IDH2 және тыныс тізбегі компоненттерін, соның ішінде I кешенімен байланысты ақуыздарды реттей алады. SOD2 супероксидті 2 O₂•⁻ + 2 H⁺ → H₂O₂ + O₂ реакциясымен өзгертеді; түзілген сутек пероксидін басқа жүйелер шығаруы тиіс. IDH2 изоцитратты α-кетоглутаратқа айналдырғанда NADPH түзеді, ал оны глутатионредуктаза тотыққан глутатионды қалпына келтіруге пайдаланады. Бұл редокс-теңгерімді қолдайтын нақты тізбек, оттектің барлық белсенді түрінің сөзбе-сөз жоғалуы емес.
SIRT3-ті генетикалық өшіру және калорияны шектеу жұмыстары осы қызметтерді жасушалар мен жануарларда анықтауға көмектеседі. Тыныс тізбегі, митохондрия мембранасы өткізгіштігі және цитохром c босап шығуының өзгерісі зақымдану мен апоптозда маңызды, бірақ апигенин капсуласы адамда бұған жол бермейтінін дәлелдемейді. Клиникаға көшу үшін бір топта экспозицияны, жол белсенділігін және маңызды нәтижені өлшеу қажет. Бұл буындар қосылмайынша, механизм картасы ATP артуын немесе өмір ұзаруын уәде ету емес, биологияны түсіндіру үшін пайдалы.
NF-κB — жасушалардың көптеген иммундық және стресс жауаптарын үйлестіретін транскрипциялық реттегіштер тобы. Классикалық жолда IKK кешені IκBα тежегішін фосфорлап, оның ыдырауына ықпал етеді және көбіне p50/p65 түріндегі NF-κB-ге ядрода транскрипцияға әсер етуге мүмкіндік береді. Бұл әрбір қабыну ауруының толық механизмі емес, жалпы жолдың сипаттамасы. Әртүрлі модельде апигенин осы жүйенің жеке сатыларына әсер етті, әрі нәтижелер үнемі бірдей болмады.
LPS белсендірген тышқан макрофагтарында апигенин COX-2 және iNOS экспрессиясын және тиісті транскрипциялық жауаптарды азайтты. COX-2 PGE₂ қоса простаноидтарды түзуге, iNOS/NOS2 индукцияланатын NO түзілуіне қатысады. NO мен супероксид қатар артық болса, NO• + O₂•⁻ → ONOO⁻ реакциясы жүруі мүмкін, бірақ NO-ның қалыпты сигналдық қызметі де бар. Қабынған жасуша өсіндісінде түзілу азаюы осы заттардың бәрін ағза бойы тежеу пайдалы дегенді білдірмейді.
Адам моноциттері мен тышқан макрофагтарын қамтыған басқа бастапқы жұмыста қабыну жауаптарының төмендеуі p65-тің Ser536 бойынша фосфорлануының азаюымен қатар жүрді. Бірақ IκBα ыдырауы жалғасты, ал NF-κB-нің ДНҚ-мен байланысуы жойылған жоқ. Туыстас флавоноидтарды TNF арқылы ынталандырған бөлек жұмыста да ерте сатылардың бірқатары бұғатталмаған. Сондықтан апигенинді IKK, ядролық тасымал және ДНҚ байланысуын бір мезетте сөндіретін әмбебап тетік ретінде көрсетуге болмайды.
Жасушада COX-2 экспрессиясының азаюы дәрілік деңгейдегі таңдамалылықты да, қабынуға қарсы препараттармен салыстырғанда асқазан-ішек қаупінің жоқтығын да анықтамайды. LPS туғызған тышқан өлімі моделіндегі қорғау адам сепсисін емдеуге тең емес. Маман үш деңгейді ажыратуы керек: сигналдық ақуыздың өзгеруі, медиатор түзілуінің азаюы және ауру нәтижесінің жақсаруы. Олардың байланысы болуы мүмкін, бірақ әрбір ауысу жеке зерттеуді талап етеді.
Микроглия бойынша тәжірибелік жұмыста апигенин мен лютеолин STAT1-ге әсер ету арқылы IFN-γ индукциялаған CD40 экспрессиясын азайтты. Жасуша желісі, бастапқы микроглия өсінділері және IL-6 мен TNF қоса қабыну медиаторлары зерттелді. Бұл микроглияның адамда «M1»-ден «M2»-ге клиникалық ауысуын дәлелдемейді және бір әмбебап STAT3 жолы туралы жұмыс емес. Нақты микроглия күйлері екі полюстен күрделірек, сондықтан практикалық қорытынды — емдік қолданылуы әлі анықталмаған перспективалы зерттеу нысанасы.
Агликонның нашар еруі препарат құрамын маңызды етеді, бірақ бір сатыны жақсарту басқаларын жоймайды. Бөлшектер еруін түсіндіруге Нойес—Уитни қатынасы жиі қолданылады: dm/dt = D × A × (Cs − C) / h. Мұнда dm/dt — ерітіндіге өту жылдамдығы, D — диффузия коэффициенті, A — қолжетімді бет ауданы, Cs — қанығу концентрациясы, C — ағымдағы концентрация, h — диффузиялық қабаттың тиімді қалыңдығы. Ұсақтау A-ны арттыруы мүмкін, бірақ бөлшек агрегациясы мен орта қасиеттері күтілетін нәтижені өзгертеді.
Фосфолипид кешендері мен липосомалар басқа тәсілді қолданады: заттың су және липид ортамен әрекеттесуін өзгертеді. Апигенин–фосфолипид APLC кешенімен тәжірибеде ерігіштік зерттелген бос затқа қарағанда 36 еседен астам артты; кейін фармакокинетика мен антиоксиданттық көрсеткіштер жануарларда зерттелді. Бұл нақты құрамның нәтижесі, «фитосома» деген кез келген құтының кепілді артықшылығы емес. Липосомада да өлшем, тұрақтылық, қапталған зат үлесі және ауыздан қабылдағаннан кейінгі әрекет маңызды, бір болжамды нанометр ауқымы жеткіліксіз.
Концентрация қисығы астындағы ауданның ұлғаюы да міндетті түрде пайдалы клиникалық әсерді күшейтпейді. Бастапқы молекула ма, конъюгаттар ма өлшенгенін, қай топ зерттелгенін және қауіпсіздік пен нысана тінге жету қалай өзгергенін білу қажет. Ауыз арқылы қабылданатын липид түрі автоматты түрде «бауырды айналып өтпейді», ал егеуқұйрықтағы экспозиция еселігін адамға зерттеусіз көшіруге болмайды. Сондықтан адам биожетімділігі 3,5–5,2 есе артады немесе мида емдік концентрацияға жетеді деген мәлімдемеге дәл сол өнімнің дерегі қажет.
Практикалық бағалау құрамды анықтау мен қолдану мақсатын түсінуден басталады. Тағам түрін, түймедақ сығындысын және тазартылған апигенинді бөлек қарастыру керек; жапсырма қай компонент қандай мөлшерде барын көрсетуі тиіс. Маманның келесі сұрағы — осы түрге қатысты тиісті нәтиже өлшенген адам зерттеуі бар ма, әлде тек зертханалық ерігіштік пе. Онсыз жеткізу технологиясы расталған ем хаттамасы емес, фармацевтикалық қасиет болып қалады.
Апигенинді жиі магниймен, L-теанинмен немесе глицинмен «ұйқыға арналған стекке» біріктіреді. Бірақ жүйке жүйесіне әсер ететін молекулаларды бірге сипаттау дайын қоспаның тиімділігі мен қауіпсіздігін дәлелдемейді. Үйлесім үшін нақты түр, доза, қабылдау уақыты және клиникалық нәтиже маңызды; келтірілген тәжірибелер мұндай стекті тағайындауға толық негіз бермейді. Бірнеше қоспа қатар өзгертілсе, субъективті жақсаруды немесе жағымсыз әсерді бір компонентке жатқызу қиын.
Магний NMDA арнасын физиологиялық реттеуге, оның ішінде потенциалға тәуелді блокқа қатысады, бірақ магний тұзын қабылдау мида осы блокты бағыттап күшейтуге тең емес. L-теанинді анықталған таңдамалы NMDA антагонисі деп атауға болмайды, ал глицин NMDA рецепторының коагонисі әрі глицин рецепторлары арқылы жеке әрекет етеді. Сондықтан үшеуі де бірдей «қозуды басады» деген қарапайым сурет биологиялық тұрғыдан қате. Басқа компоненттің жеке зерттеулері оның дәл апигенинмен бірлескен әсерін дәлелдемейді.
NAD⁺ үшін үйлесім логикасы синтез бен жұмсалу теңгеріміне негізделеді. Никотинамид, NAM, NAMPT және PRPP көмегімен NMN-ге айналады; никотинамидрибозид, NR, NMRK арқылы NMN-ге фосфорлануы мүмкін. Кейін NMNAT ATP пайдаланып NAD⁺ және пирофосфат түзеді: NMN + ATP → NAD⁺ + PPi. Бұл жолдар ізашарлар биохимиясын түсіндіреді, бірақ кез келген ауыздан қабылданған молекула әр тін қорын тікелей және бірдей толықтырады дегенді білдірмейді.
Алғашқы сатылардың толық реакциялары: NAMPT үшін NAM + PRPP → NMN + PPi және NMRK үшін NR + ATP → NMN + ADP. Сиртуиндер мен PARP, CD38 сияқты, NAD⁺ жұмсайды, бірақ олардың қызметтері әртүрлі және олар жасуша күйінің бірыңғай ауыстырғышын құрмайды. Сондықтан прекурсорлардан синтезделуді, жасуша бөлімдері арасындағы таралуды және әр тұтынушының белсенділігін бөлек қарастыру керек.
Никотинамидтің бір бөлігі NNMT арқылы метилденуі мүмкін: NAM + SAM → 1-метилникотинамид + SAH. Мұнда метил доноры — триметилглицин емес, S-аденозилметионин, SAM. Бетаин немесе TMG көбіне бауыр мен бүйректе BHMT катализдейтін басқа реакцияға қатысады: бетаин + гомоцистеин → диметилглицин + метионин. Метионин алмасуы арқылы байланысу TMG-ні NNMT-нің тікелей кофакторы етпейді және оны NAD⁺ ізашарларымен міндетті бірге қабылдауды белгілемейді.
NAD⁺ жұмсалуын апигенинмен ықтимал шектеу және синтезді ізашарлармен көбейту — тексеруге болатын гипотеза, дәлелденген емдік синергия емес. Ресвератролға да осындай сақтық қажет: SIRT1-ді тікелей белсендіру жұмыстары субстратқа және талдау жүйесіне тәуелді болды. Өзгертілмеген субстрат тәжірибелері мен контекстік аллостериялық белсендіруді қолдайтын жұмыстарды «ресвератрол SIRT1-ді қосады» ұранына біріктіруге болмайды. Бұлар өмірді ұзартуға немесе нейродегенерацияның алдын алуға арналған клиникалық тексерілген апигенин–NMN/NR–ресвератрол–TMG үйлесімін жасамайды.
Тазартылған апигенин үшін ұйқысыздықта, мазасыздықта немесе NAD⁺ сақтауда жалпы қабылданған адамға арналған емдік диапазон жоқ. Сондықтан «ұйқы үшін» 50–100 мг және «CD38 үшін» 250–500 мг мөлшерлерін тексерілген клиникалық хаттама деп көрсетуге болмайды. Ұйқыдан 45–60 минут бұрын қабылдау да кеш плазмалық шыңы бар тағамдық кинетикадан немесе тышқанға құрсақ ішіне енгізу тәжірибесінен шықпайды. Түрлер экспозицияны өзгерте алады, бірақ әзірге IC₅₀-ден өз бетімен емдік терезе есептеуге негіз бермейді.
| Мақсат | Шын мәнінде не бар | Не әлі жеткіліксіз |
|---|---|---|
| Ұйқыны жақсарту | Белгілі түймедақ сығындысының пилоттық зерттеуі | Қайталанатын артықшылық және таза апигенин режимі |
| Мазасыздықты азайту | Мазасыздық бұзылысы бар пациенттерде сығындының шағын зерттеулері | Сығынды мен апигенин теңдігі; әмбебап тағайындау |
| NAD⁺ қолдау | Ферменттік, жасушалық және тышқан деректері | Клиникалық нәтиже және қауіпсіз тиімді пероральдық доза |
| Нейроқабынуды азайту | Тәжірибелік модельдердегі сигнал өзгерісі | Неврологиялық ауруды дәлелденген емдеу |
Зертханада апигенин CYP2C9 арқылы лозартан метаболизмін тежеді; адамның бауыр микросомаларында IC₅₀ 4,10 мкмоль/л болды. Диклофенакпен басқа сынақта CYP2C9-ды бәсекелес тежеудің IC₅₀ шамасы 9,51 мкмоль/л болды. Бұл капсула қабылдайтын пациенттегі өлшенген өзара әсер шамасы емес, бірақ концентрленген қоспалар мен қауіпсіздік аралығы тар дәрілерді талқылауда маңызды белгі. Апигениннің CYP1A2 және CYP3A4 арқылы метаболизмі туралы жұмыстарды да осы ферменттердің бәрін бірдей тежеудің клиникалық дәлелі деп түсінуге болмайды.
Түймедақ туралы ресми мәліметтер варфаринмен, бауырда метаболизденетін кейбір дәрілермен және седативті заттармен ықтимал өзара әсерді ескертеді. Сығынды мен таза флавон бірдей емес, сондықтан әр өнімнің қаупі жеке сұрақ болып қалады. Антикоагулянт, ұйықтататын не мазасыздыққа қарсы дәрі немесе бірнеше препарат қабылдайтын адам концентрленген апигенинді дәрігермен немесе клиникалық фармакологпен талқылауы керек. Зертханалық деректен тағайындалған емді өздігінен тоқтатуға немесе 300–500 мг «қауіпсіз өзара әсер шегін» белгілеуге болмайды.
Түймедаққа аллергиялық реакциялар, соның ішінде сирек ауыр түрлері, әсіресе күрделігүлділер тұқымдасының туыстас өсімдіктеріне сезімтал адамдарда сипатталған. Жүрек айнуы немесе бас айналуы да болуы мүмкін; әдеттегі тағам мөлшері концентрленген препаратқа тең емес. Жүктілік, емізу және балаларда тазартылған апигенинді тағайындауға жеткілікті дерек жоқ. Метаболизм мен шығарылуға әсер ететін бауыр және бүйрек аурулары стандартты доза жорамалдарын қолдануды одан әрі қиындатады.
Жануардың жеке тәжірибесіндегі төмен жедел уыттылық адамда айлар бойы қолданудың қауіпсіздігін белгілемейді. Ұзақ түймедақ сынағы мың миллиграм апигенинді емес, 1500 мг сығындыны зерттеді және мазасыздық бұзылысы бар іріктелген пациенттерді қамтыды. Дәлелденген тәуелділіктің жоқтығы барлық түр мен дозада толеранттылық, тоқтату әсері немесе когнитивтік өзгеріс болмайтынын дәлелдемейді. Бақылаудың аздығын жарнамалық артықшылыққа айналдырмай, бұл сұрақтарды ашық қалдыру керек.
Практикада апигенин қазір молекулалық қисындылық пен клиникалық қолдануға дайындықтың арасы қаншалықты алшақ болуы мүмкін екенін көрсететін мысал ретінде пайдалы. Флавон бар тағам зертханалық концентрацияға жетуге тырыспай-ақ әртүрлі рационға ене алады. Қоспа таңдағанда алдымен мәселені анықтап, дәрілерді бағалап, нақты түрдің адамдағы дерегін іздеу орынды; тұрақты ұйқысыздық не мазасыздықта толық клиникалық көмек басымдық болып қалады. CD38, сиртуиндер мен қабыну зерттеулері болашақ жұмысқа мазмұнды бағыт береді, бірақ әзірге апигенинді әмбебап ұйықтататын, мазасыздыққа қарсы немесе қартаюға қарсы құрал етпейді.
Жоқ. Рецептор орнына байланысу бүкіл фармакологиялық бейінді анықтамайды. Функционалдық тәжірибелерде әсер әртүрлі болды, ал адам дерегі седативті немесе басқа қаупі жоқ таңдамалы мазасыздыққа қарсы құралды растамайды.
Тазартылған апигениннің жалпы қабылданған режимі жоқ. Түймедақ сығындысының пилоттық сынағы негізгі ұйқы көрсеткіштерінде мәнді артықшылық көрсетпеді. Сығынды миллиграмын дәл сондай таза флавон дозасына айналдыруға болмайды.
Апигенин N3-ті немесе глимфалық үдерістерді арттыратынын растайтын сапалы адам дерегі жоқ. Егеуқұйрықтың ұйқыға кетуі туралы нәтиже мен жалпы ұйқы физиологиясы бұл әсерді дәлелдемейді.
Бұл белгілі талдауда белсенділік екі есе азайған концентрация. Апигенин үшін ол 100–300 нмоль/л емес, шамамен 10–13 мкмоль/л болды. Бұл мән қоспа дозасын анықтамайды және адамның тінінде осы концентрацияға жететінін көрсетпейді.
NAD⁺ қоры молекула қолжетімділігін, NAD⁺/NADH қатынасы редокс-күйдің бір бөлігін көрсетеді. Екеуі компартмент пен өлшеу тәсіліне тәуелді. Біреуінің өзгеруі екіншісінің өзгеруіне немесе клиникалық пайдаға кепіл емес.
Міндетті үйлесімге тексерілген клиникалық негіз жоқ. NAD⁺ синтезі мен жұмсалу жолдары гипотезаны түсіндіреді, қоспа тиімділігін дәлелдемейді. TMG BHMT реакциясына қатысады және NNMT-ге тікелей метил доноры емес.
Жоқ. Нақты тәжірибелік фосфолипид кешенінің ерігіштігі жақсарып, кинетикасы жануарларда зерттелді. Клиникалық артықшылық үшін осы өнімді адамдарда қажетті нәтиже бойынша сынау керек.
Антикоагулянт, седативті және басқа дәрілерді қабылдау, бауыр немесе бүйрек ауруы, жүктілік пен емізу кезінде жеке бағалау қажет. Балаларға ересек не жануар моделімен есептелген дозаны беруге болмайды. Күрделігүлділерге сезімтал адамдарда түймедақ аллергия тудыруы мүмкін.