
Апигенин: ГАМК-рецепторы, CD38, NAD⁺ и сон
Как апигенин всасывается и метаболизируется, почему его действие на ГАМК-рецепторы неоднозначно и что исследования CD38 и ромашки действительно позволяют сказать о сне, тревоге, NAD⁺ и безопасности.
Как апигенин всасывается и метаболизируется, почему его действие на ГАМК-рецепторы неоднозначно и что исследования CD38 и ромашки действительно позволяют сказать о сне, тревоге, NAD⁺ и безопасности.
Апигенин знаком многим раньше, чем его название: он входит в состав ромашки, петрушки и сельдерея. Однако чашка настоя, растительная пища, стандартизованный экстракт и капсула очищенного флавона представляют разные воздействия на организм. Между количеством вещества на этикетке и его действием в мозге лежат растворение, кишечный и печёночный метаболизм, распределение между тканями и доступ к конкретной мишени. Именно этот маршрут помогает понять, почему интересные результаты с рецепторами и ферментами пока не складываются в доказанное средство от бессонницы или старения.
У апигенина есть несколько экспериментально исследованных направлений действия: взаимодействие с ГАМК-рецепторами, подавление активности NAD⁺-расходующего фермента CD38 и изменение воспалительной сигнализации. Эти направления связаны с важными физиологическими процессами, но каждое требует собственного доказательства у человека. Снижение ферментативной активности в пробирке не означает, что обычная пероральная доза воспроизведёт нужную концентрацию в клетке. Ниже молекулярные механизмы рассматриваются вместе с условиями опытов, а человеческие исследования ромашки — с их клиническими результатами и ограничениями.
Апигенин — 4′,5,7-тригидроксифлавон с формулой C₁₅H₁₀O₅ и молярной массой 270,24 г/моль. Его каркас C₆–C₃–C₆ включает два ароматических кольца, A и B, и соединяющее их кислородсодержащее кольцо C. В кольце C расположены двойная связь C2=C3 и карбонильная группа у C4; гидроксилы находятся у C5, C7 и C4′. Такая структура определяет распределение электронной плотности, водородные связи и возможность взаимодействия с белками, но сама по себе не доказывает высокое сродство к CD38 или определённому рецепторному подтипу.
Сопряжённая система делает хромоновое ядро относительно жёстким, однако поворот кольца B и геометрия связанного комплекса зависят от окружения. Поэтому нельзя выводить селективность молекулы из утверждения о её неизменной «идеальной плоскости». Фенольные OH-группы участвуют в взаимодействиях с растворителем и одновременно служат участками метаболической конъюгации. Наличие химических возможностей связывания или антиоксидантных реакций также не равно клиническому антиоксидантному эффекту: важны концентрация, среда и конкурирующие реакции.
Для очищенного агликона существенна низкая растворимость в воде. В ранней работе по физико-химическим свойствам коэффициент распределения между октанолом и водой соответствовал log K = 2,87, а растворимость сильно различалась между исследованными растворителями и поверхностно-активными средами. Эти результаты объясняют интерес к системам доставки, но не устанавливают универсальную растворимость любого продукта и не позволяют присвоить всем препаратам один класс BCS. Биофармацевтическая классификация требует оценки растворимости в заданных условиях и проницаемости; запись «II/IV» не заменяет такую оценку.
В растениях апигенин часто связан с сахарными остатками. Апигетрин представляет собой апигенин-7-O-глюкозид, а апиин содержит при том же положении апиозилглюкозный фрагмент. Различие между этими гликозидами влияет на доступность для гидролаз и на место высвобождения агликона в кишечнике. Поэтому даже одинаковое количество апигенинового ядра в петрушке, ромашковом экстракте и очищенной добавке не гарантирует одинакового времени или величины системной экспозиции.
Чтобы растительная молекула стала доступна тканям, её сначала нужно высвободить из пищевой матрицы и, для многих O-гликозидов, отделить сахарную часть. В этом процессе могут участвовать гидролазы щёточной каймы, включая лактаза-флоридзин-гидролазу, а также кишечная микробиота. Цитозольная β-глюкозидаза способна расщеплять подходящие субстраты внутри клетки, но наличие такого фермента ещё не объясняет, как конкретный гликозид пересёк мембрану. Для апиина дополнительный сахарный остаток усложняет гидролиз; часть превращений смещается к дистальным отделам кишечника.
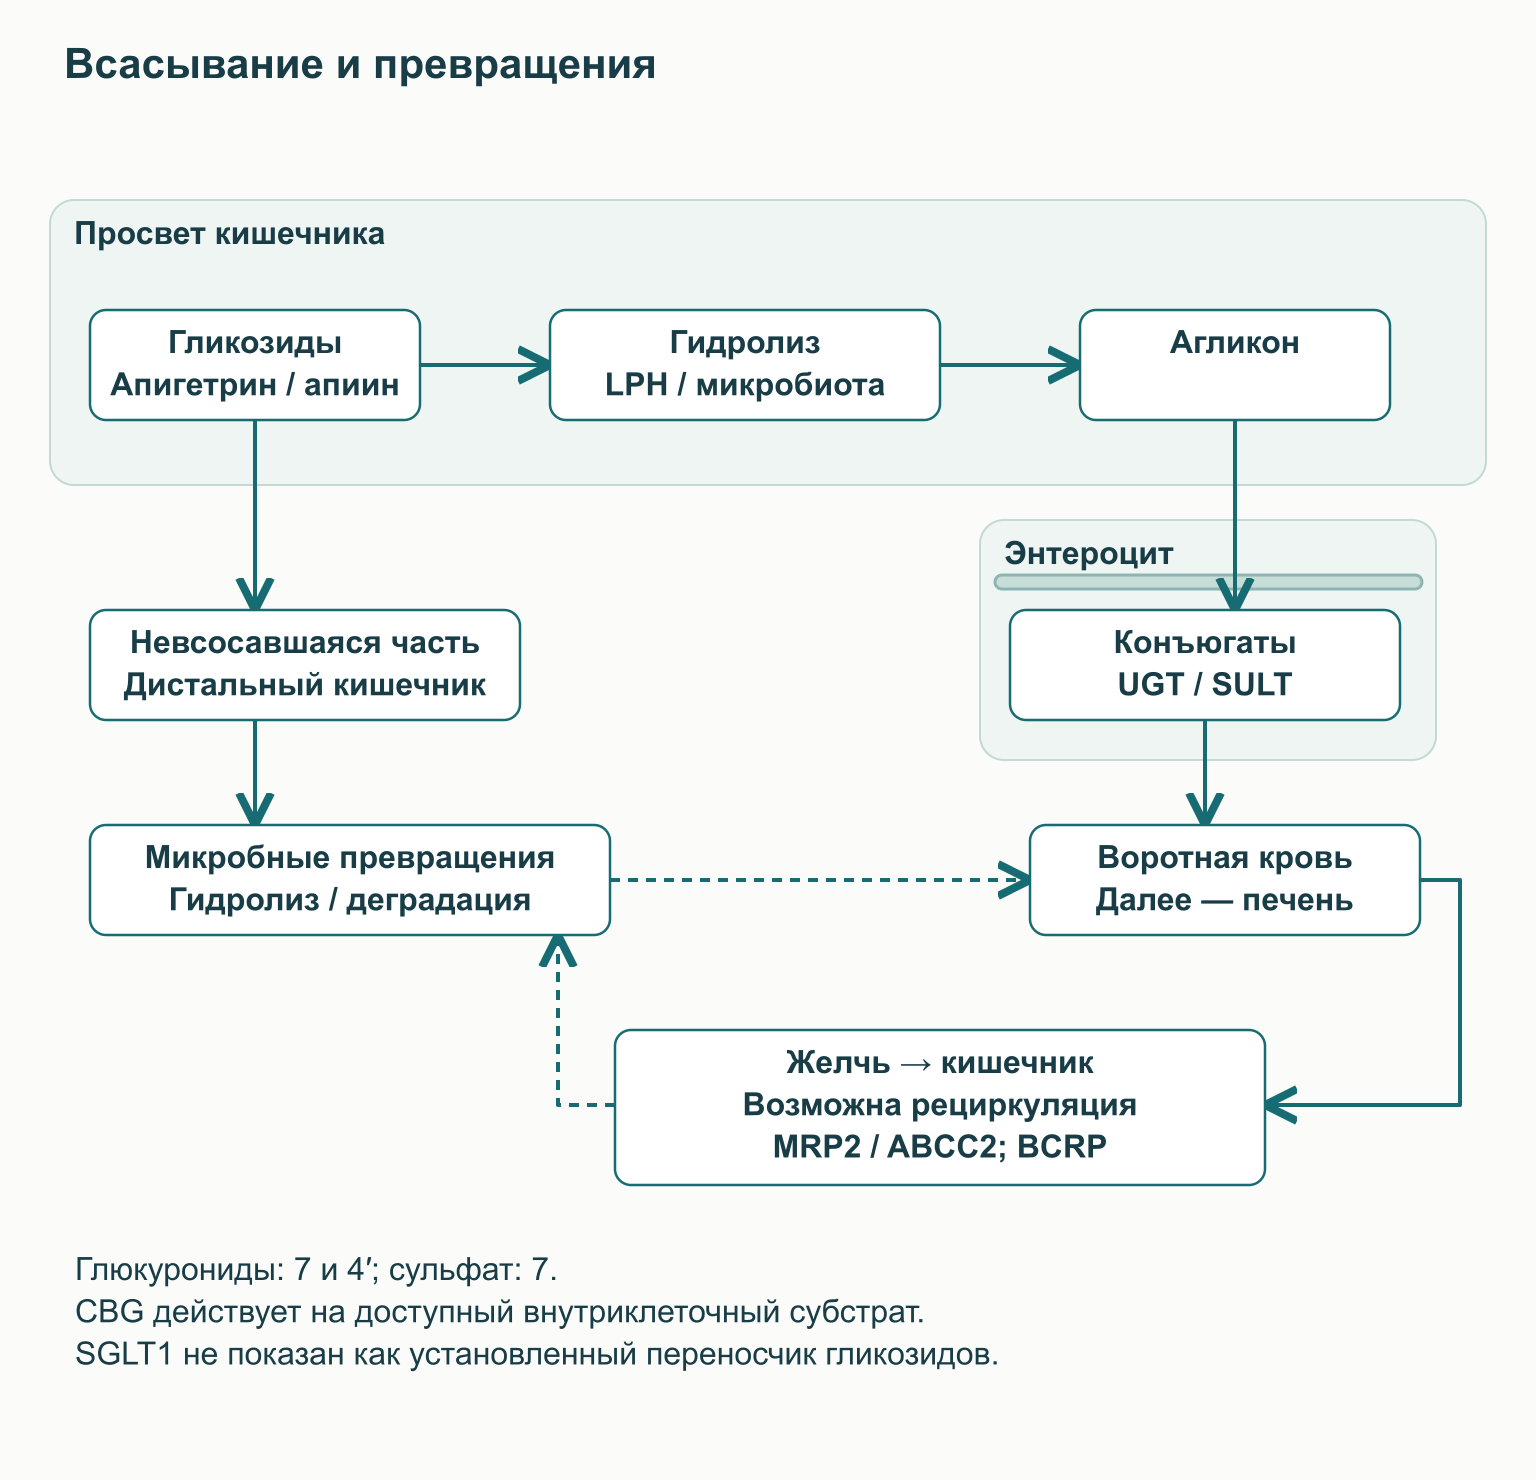
Популярная схема, в которой SGLT1 переносит гликозиды флавоноидов вместе с глюкозой, слишком определённа. В опытах с человеческим SGLT1, экспрессированным в ооцитах, исследованные флавоноидные гликозиды не вызывали транспортного тока, хотя некоторые подавляли захват глюкозы. Это модель транспорта, а не исследование всасывания в живом человеке, но она показывает, почему прямую стрелку «SGLT1 → апигенин» нельзя считать установленным маршрутом. Наиболее надёжно говорить о зависимости абсорбции от структуры гликозида, гидролиза и свойств кишечной среды.
После поступления в энтероцит агликон подвергается глюкуронированию и сульфатированию, а дальнейший метаболизм происходит в печени. В исследовании здоровых мужчин были идентифицированы апигенин-4′-глюкуронид, апигенин-7-глюкуронид и апигенин-7-сульфат. UGT и SULT обозначают семейства соответствующих ферментов; вклад отдельных изоформ зависит от ткани и экспериментальных условий. Конъюгированный метаболит нельзя автоматически считать фармакологически равным свободному апигенину, поскольку меняются проницаемость мембран, связывание с белками и доступ к мишеням.
Часть конъюгатов выводится транспортными системами кишечника и печени; желчное выведение и последующий бактериальный гидролиз могут создавать возможность повторного всасывания. В таких маршрутах участвуют эффлюксные белки, включая MRP2/ABCC2 и BCRP, но их относительный вклад нельзя переносить из одной клеточной модели на все формы добавок. Микробные превращения могут также разрушать флавоновый каркас до более простых фенольных соединений. Поэтому длительное обнаружение метки или метаболитов не доказывает столь же длительное присутствие активного агликона; универсальное человеческое время полувыведения 12–24 часа для всех продуктов не установлено.
Показателен пищевой эксперимент с 11 здоровыми взрослыми, которым дали бланшированную петрушку из расчёта 2 г/кг массы тела. Средняя нагрузка составляла 65,8 мкмоль апигенина, приблизительно 18 мг, а измеряемый плазменный пик достигал 127 ± 81 нмоль/л через 7,2 ± 1,3 часа. С мочой за сутки определили 0,22 ± 0,16% введённого количества; эта доля не является оценкой абсолютной биодоступности, потому что не учитывает все метаболиты и пути выведения. Такой большой пищевой объём использовался для исследования кинетики, а не как практическая рекомендация есть петрушку килограммами или как модель любой капсулы.
Отдельное исследование метаболизма у мужчин также показало, что форма вещества и пищевой источник меняют профиль циркулирующих соединений. Его первая часть включала четырёх участников, а последующие повторные кормления изучали вариабельность; число кормлений нельзя принимать за число независимых людей. Эти работы дают человеческую опору для обсуждения абсорбции, но не показывают концентрацию свободного апигенина в мозге. Сопоставляя их с микромолярными клеточными опытами, следует учитывать различие между общей аналитически определяемой экспозицией, несвязанной фракцией и локальной концентрацией в ткани.
ГАМК — главный медиатор быстрого торможения во многих нейронных сетях, а рецептор GABA_A представляет собой пентамерный ионный канал. Распространённые синаптические варианты содержат две α-, две β- и одну γ-субъединицу, хотя их набор меняется между отделами мозга. ГАМК связывается на внеклеточном интерфейсе β⁺/α⁻, тогда как классический бензодиазепиновый участок расположен на интерфейсе α⁺/γ⁻. Это разные места одного белкового комплекса: аллостерический лиганд может менять ответ канала на ГАМК, не заменяя её в основном участке связывания.
Открытый канал проводит преимущественно анионы, и действие ГАМК определяется электрохимическим градиентом, а не только наличием хлора. В зрелых нейронах ответ обычно поддерживает торможение через гиперполяризацию и/или шунтирование возбуждающего тока. При другом внутриклеточном содержании Cl⁻, например в отдельных стадиях развития или патологических состояниях, знак изменения мембранного потенциала может отличаться. Таким образом, вход Cl⁻ и гиперполяризация не составляют обязательную последовательность для любой клетки.
В раннем исследовании Viola апигенин вытеснял лиганд центрального бензодиазепинового участка с Ki около 4 мкмоль/л. У мышей в определённых дозах наблюдалось поведение, интерпретированное как анксиолитическое, без выраженных двигательных изменений; при десятикратно большей дозе обнаруживались признаки седации. Это поддерживает интерес к взаимодействию с рецепторной системой, но не устанавливает эффективную концентрацию в человеческом мозге или отсутствие нежелательных эффектов. Ki характеризует связывание в конкретном опыте и не является дозой для приёма внутрь.
Более поздние функциональные исследования не дают единой картины положительной модуляции. В опытах Avallone апигенин уменьшал ГАМК-активируемые токи в культуре нейронов; в работе Losi он также снижал токи рекомбинантного α1β2γ2-рецептора и менял тормозную передачу в корковых культурах. Losi дополнительно наблюдал подавление NMDA-ответов с IC₅₀ около 10 мкмоль/л при гораздо меньшем действии на AMPA-ответы. Эти результаты относятся к клеточным системам и показывают множественность мишеней, а не клиническое лечение тревоги за счёт избирательного усиления ГАМК.
В другом рекомбинантном опыте апигенин в концентрации 1 мкмоль/л усиливал положительную модуляцию диазепамом ответа на ГАМК, причём эффект зависел от сочетания исследуемых веществ. Усиление действия уже присутствующего бензодиазепина не равно самостоятельному положительному действию апигенина. Различия между опытами могут отражать состав рецепторов, концентрацию, экспрессионную систему и исходный уровень активации. Практически это аргумент против домашнего комбинирования с седативными лекарствами ради «синергии».
| Подтип α-субъединицы | Что известно о рецепторной физиологии | Что нельзя утверждать об апигенине |
|---|---|---|
| α1 | Участвует в ряде седативных и других эффектов бензодиазепинов | Что слабое действие на α1 надёжно исключает сонливость |
| α2 | В экспериментальной фармакологии связан с компонентами анксиолиза | Что апигенин клинически избирателен к α2 |
| α3 | Вносит вклад в тормозную передачу и эффекты некоторых модуляторов | Что для апигенина установлена отдельная полезная «умеренная» активность |
| α5 | Значим для отдельных сетей, включая гиппокампальные процессы | Что отсутствие действия на α5 гарантирует сохранность памяти |
Разделение функций рецепторных подтипов полезно для разработки лекарств, но оно не превращает растительную молекулу в селективный препарат. Для апигенина недостаточно данных, чтобы описывать его как доказанный α2-предпочитающий частичный положительный аллостерический модулятор. Тем более нельзя из такого обозначения выводить отсутствие амнезии, миорелаксации, толерантности или синдрома отмены у человека. Эти клинические свойства требуют самостоятельных исследований при известной форме, дозе и длительности.
Засыпание зависит от взаимодействия циркадных сигналов, накопленной потребности во сне и систем бодрствования. ГАМК-содержащие нейроны преоптических областей участвуют в торможении ряда центров бодрствования, но связывание вещества с рецептором ещё не показывает его избирательное действие на эти сети. Дельта-активность примерно 0,5–4 Гц характерна для медленноволновых процессов; тета-диапазон около 4–8 Гц встречается в нескольких состояниях и не является самостоятельным признаком восстановительного сна. Для апигенина не показано в качественных человеческих испытаниях, что он увеличивает N3, сохраняет REM в заданной пропорции или улучшает память через изменение этих ритмов.
В эксперименте с нарушенным сном у крыс ромашковый экстракт в дозе 300 мг/кг сокращал латентность сна, но не изменял суммарное время бодрствования, NREM или REM. Экстракт содержит несколько веществ, а введённое животному количество нельзя напрямую пересчитать в рекомендуемые миллиграммы чистого апигенина человеку. Этот результат не подтверждает увеличение глубокой стадии N3 или «нормализацию архитектоники» человеческого сна. Обсуждение глимфатических процессов и ночной секреции гормонов также не позволяет приписывать настою или добавке доказанное усиление очищения мозга и восстановления тканей.
Наиболее прямое плацебо-контролируемое испытание при хронической первичной бессоннице включало 34 взрослых. Они получали стандартизованный ромашковый экстракт по 270 мг дважды в сутки на протяжении 28 дней. Значимого преимущества по общей продолжительности сна, его эффективности и основным ночным показателям не обнаружили. Пилотный размер выборки допускает неопределённость, но результат не поддерживает обещание надёжного снотворного эффекта; тем более он не проверяет отдельную капсулу апигенина.
Для тревоги имеется другая клиническая линия. В небольшом восьминедельном исследовании 57 человек с генерализованным тревожным расстройством сравнивали ромашковый экстракт и плацебо; дозу экстракта увеличивали в рамках протокола, а не задавали как количество чистого флавона. Работа обнаружила сигнал возможного уменьшения тревожных симптомов, однако исследуемая смесь не позволяет установить, какое вещество обеспечило результат. Симптомы тревоги и показатели сна различны, поэтому даже положительный результат по одной шкале нельзя переносить на стадии сна или предупреждение рецидивов.
Более длительное исследование сначала включило 179 пациентов в открытый 12-недельный этап с 1500 мг ромашкового экстракта в сутки. Затем 93 ответивших участника распределили между продолжением экстракта и плацебо на 26 недель. Рецидив произошёл у 7 из 46 продолжавших лечение и у 12 из 47 получавших плацебо; отношение рисков составило 0,52, но 95%-й интервал 0,20–1,33 включал отсутствие эффекта. Первичный результат не был статистически значимым, хотя по отдельным симптомным показателям выявлялись различия; отбор предварительно ответивших пациентов ограничивает переносимость вывода на всех людей с тревогой.
| Исследование | Популяция, форма и длительность | Практическое прочтение |
|---|---|---|
| Пилот при бессоннице | 34 взрослых; ромашковый экстракт 270 мг дважды в сутки, 28 дней | Преимущество по основным показателям сна не показано |
| Первое испытание при тревоге | 57 пациентов; титрование ромашкового экстракта, 8 недель | Возможный симптомный эффект смеси; не испытание чистого апигенина |
| Продолжение лечения тревоги | 93 ответивших пациента после открытого этапа; 1500 мг экстракта/сутки, ещё 26 недель | Первичная профилактика рецидива не достигла статистической значимости |
Миллиграммы ромашкового экстракта нельзя читать как миллиграммы апигенина. Кроме того, стандартизация не делает разные смеси взаимозаменяемыми: важны состав, способ извлечения и аналитический контроль. При хронической бессоннице исходной задачей остаётся оценка её причин и выбор лечения, а многокомпонентная когнитивно-поведенческая терапия имеет сильную рекомендацию профильного руководства. Настой может оставаться частью вечернего ритуала, но не должен откладывать помощь при устойчивой бессоннице, выраженной дневной сонливости или подозрении на нарушение дыхания во сне.
NAD⁺ выполняет две принципиально разные роли. В окислительно-восстановительных реакциях он принимает электроны и превращается в NADH, который затем снова окисляется; в реакциях сиртуинов, PARP и ряда других ферментов молекула расходуется как субстрат. Поэтому общий запас NAD⁺, отношение NAD⁺/NADH и скорость потребления — связанные, но не одинаковые показатели. Их измерение в ткани также не показывает автоматически концентрацию в ядре, цитозоле или митохондриальном матриксе.
CD38 обладает NAD⁺-гликогидролазной и ADP-рибозилциклазной активностью. Для гидролиза удобно записать NAD⁺ + H₂O → никотинамид + ADP-рибоза; при циклизации образуются никотинамид и циклическая ADP-рибоза, cADPR. cADPR участвует в кальциевой сигнализации, поэтому CD38 не является просто «вредным разрушителем энергии». Соотношение продуктов зависит от условий реакции: утверждение о фиксированном расходовании ста молекул NAD⁺ на одну cADPR не представляет собой универсальную стехиометрию.
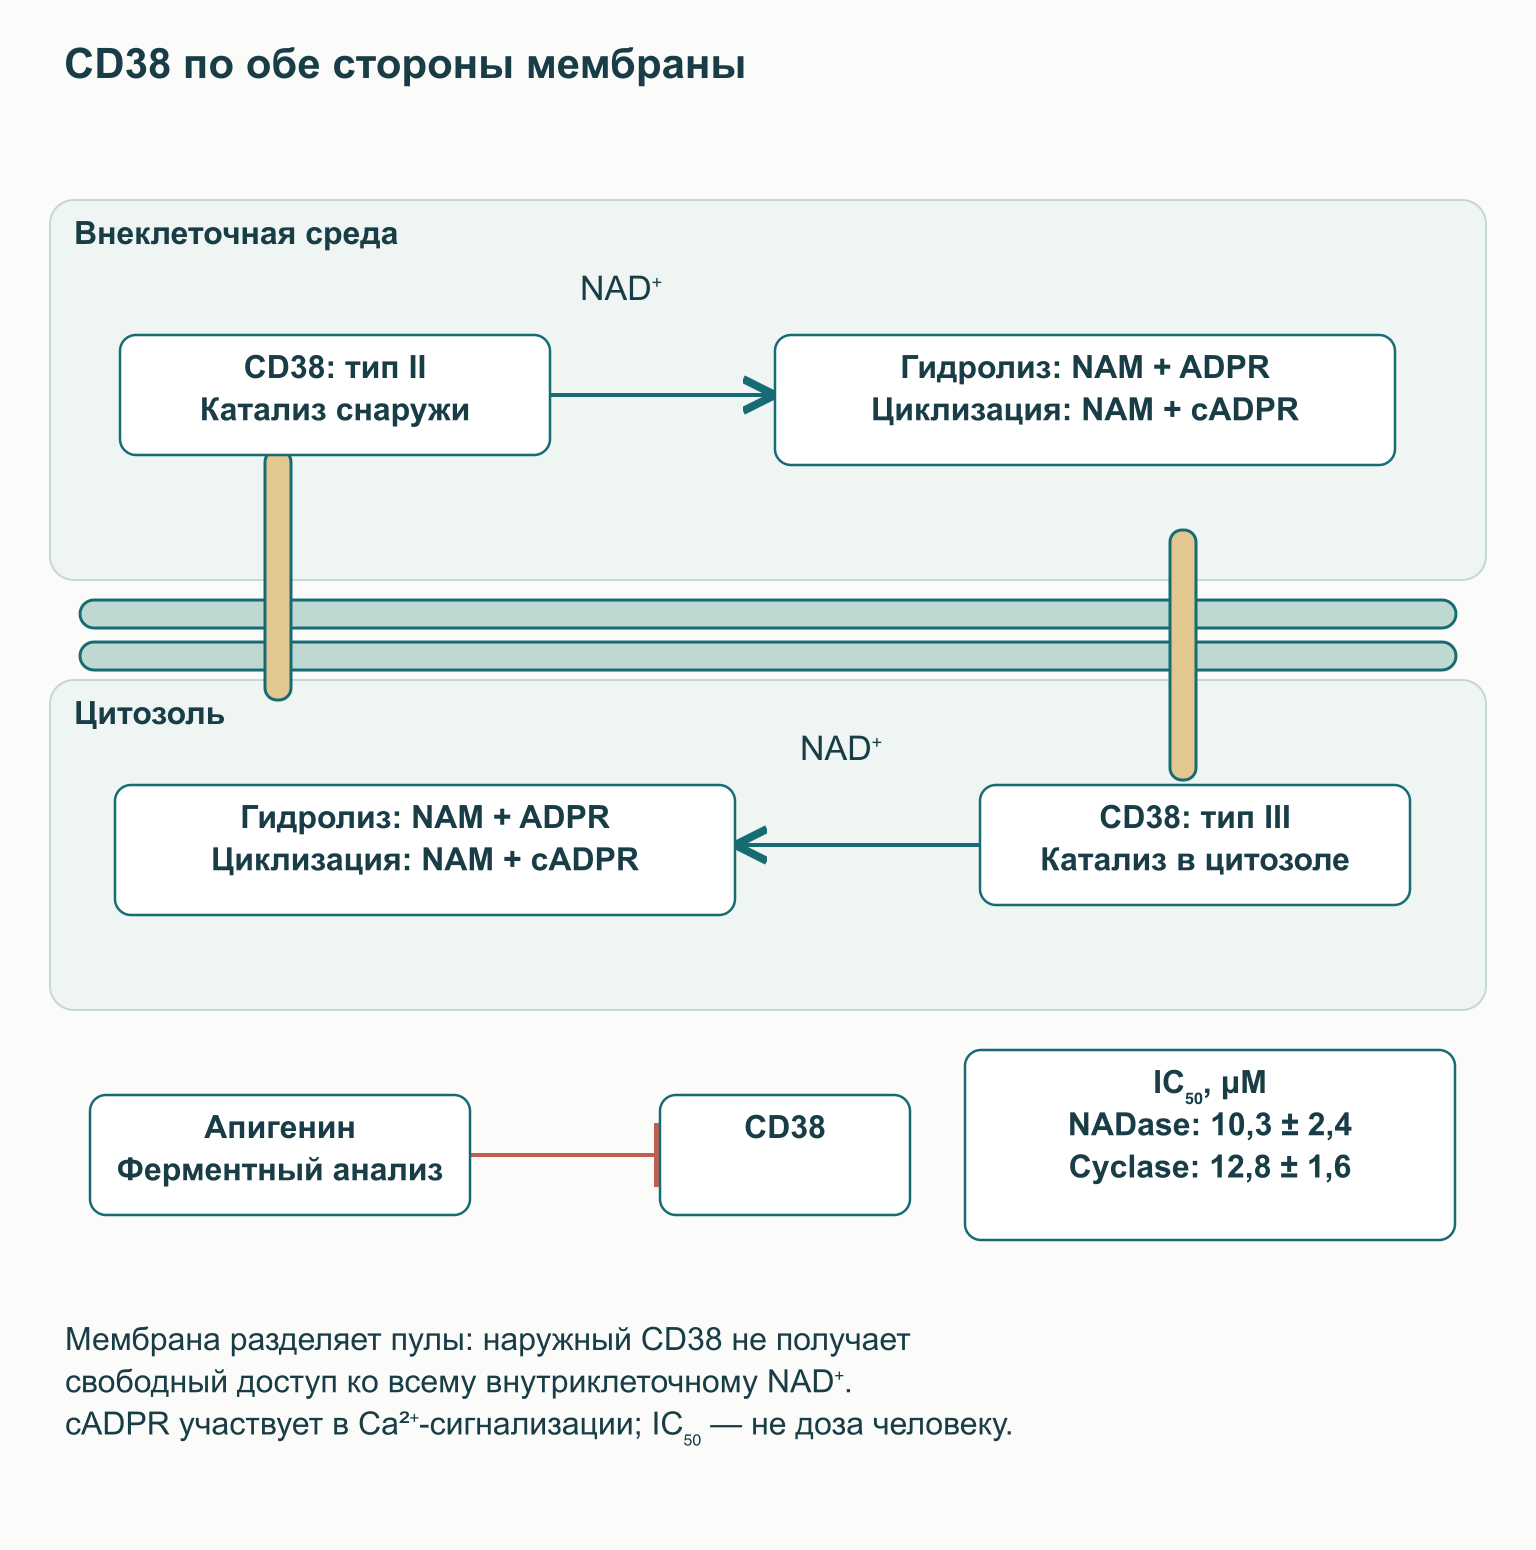
Для понимания клеточного результата важна ориентация фермента. У распространённой формы CD38 типа II каталитическая часть обращена наружу клетки или в просвет соответствующего мембранного компартмента; у формы типа III она ориентирована к цитозолю. Значит, наружный фермент нельзя рисовать как беспрепятственно поглощающий весь внутриклеточный NAD⁺ через непроницаемую мембрану. Изменение доступности внеклеточных предшественников, внутриклеточные формы белка и межклеточная организация ткани помогают объяснять эффект, но требуют отдельных данных.
В мышиных моделях CD38 существенно участвовал в возрастном снижении NAD⁺ и митохондриальных изменениях, связанных с SIRT3. Другие опыты показали, что сигналы от сенесцентных клеток могут увеличивать число и активность CD38-положительных макрофагов в тканях. Это связывает воспалительную среду со скоростью расходования NAD⁺, а не доказывает один механизм старения всего организма. Величина изменения зависит от ткани, модели и метода измерения; универсальное падение NAD⁺ на 50–80% у каждого стареющего человека не установлено.
Апигенин действительно исследовали как ингибитор CD38, но его активность оказалась микромолярной. В работе Escande IC₅₀ составляла 10,3 ± 2,4 мкмоль/л для NADase-активности и 12,8 ± 1,6 мкмоль/л для циклазной активности. Это примерно на два порядка выше заявленного в исходных популярных описаниях диапазона 100–300 нмоль/л. Кроме того, IC₅₀ зависит от концентрации субстрата и условий анализа; она не равна константе связывания, концентрации в крови или безопасной дозе добавки.
После клеточных опытов авторы исследовали 12 мышей на высокожировом питании, разделённых на две группы. Апигенин вводили внутрибрюшинно по 100 мг/кг в течение семи дней и наблюдали изменения печёночного NAD⁺, ацетилирования белков и метаболических показателей. Короткое вмешательство с обходом обычного кишечного всасывания не задаёт пероральный протокол человеку и не доказывает предотвращение возрастной нейродегенерации. Данные о более мощном экспериментальном ингибиторе CD38, обозначаемом 78c, относятся к другой молекуле; её результаты нельзя приписывать апигенину.
SIRT1 и SIRT3 — NAD⁺-зависимые деацетилазы, но принадлежат разным клеточным контекстам. SIRT1 действует преимущественно в ядерных и цитозольных процессах, тогда как SIRT3 регулирует ряд белков митохондриального матрикса. Повышение доступности NAD⁺ при определённых условиях способно поддержать их реакции, однако активность зависит также от количества фермента, состояния субстрата, продуктов реакции и других регуляторов. Поэтому схема «больше NAD⁺ → все сиртуины включены → клетка омолодилась» теряет важные ограничения.
Регуляторные связи удобнее читать вместе с конкретными белками и реакциями. В таблице перечислены звенья, которые объясняют клеточную биологию; она не устанавливает эффект приёма апигенина у человека. Ни усиление одной реакции, ни наличие NAD⁺ сами по себе не гарантируют клинического улучшения.
| Звено | Реакция или мишени | Смысл и ограничение |
|---|---|---|
| SIRT1 и аутофагия | FOXO, p53; Atg5, Atg7, Atg8 | Изменение ацетилирования и стрессовых программ зависит от клетки и условий |
| SIRT3 и IDH2 | Изоцитрат + NADP⁺ → α-кетоглутарат + CO₂ + NADPH + H⁺ | Источник митохондриального NADPH, а не доказанный эффект добавки |
| Глутатионредуктаза | GSSG + NADPH + H⁺ → 2 GSH + NADP⁺ | Восстановление глутатиона; удаление H₂O₂ требует соответствующих ферментов |
| SIRT3 и дыхательная цепь | Комплекс I, включая NDUFA9; энергетический обмен | Регуляция митохондриальных белков не означает гарантированного роста ATP у человека |
Для объяснения зависимости от субстрата полезно простое кинетическое приближение v = Vmax × [NAD⁺] / (Km + [NAD⁺]). Здесь v — скорость реакции, Vmax — предел при насыщении, а Km — параметр конкретной фермент-субстратной системы. Формула показывает постепенное насыщение, а не переключатель с единственным «нормальным» диапазоном NAD⁺. Реальные сиртуиновые реакции сложнее этого приближения, поэтому один диапазон Km нельзя использовать как универсальный анализ дефицита NAD⁺ у пациента.
Один из известных партнёров SIRT1 — коактиватор PGC-1α, соединяющий сигналы энергетического состояния с транскрипцией метаболических генов. В зависимости от ткани его регуляция связана с окислением субстратов, глюконеогенезом или программами митохондриального биогенеза. PGC-1α взаимодействует с ядерными респираторными факторами NRF1 и GABP, исторически называемым NRF2, и с регуляцией TFAM, необходимого для обслуживания митохондриальной ДНК. Этот NRF2 следует отличать от антиоксидантного фактора NFE2L2; одинаковое сокращение не делает их одним белком.
SIRT1 также меняет ацетилирование FOXO-факторов, p53, компонентов аутофагии и субъединицы p65 комплекса NF-κB. Эти изменения могут перераспределять стрессовые ответы, но направление результата зависит от клетки и задачи: подавление апоптоза, например, полезно не при любых обстоятельствах. Для p65 деацетилирование Lys310 и изменение фосфорилирования Ser536 представляют разные химические события. Их нельзя объединять в одну неподписанную стрелку «апигенин выключает воспаление», поскольку пути и основания доказательства отличаются.
В митохондриях SIRT3 способен регулировать MnSOD/SOD2, IDH2 и компоненты дыхательной цепи, включая связанные с комплексом I белки. SOD2 превращает супероксид по реакции 2 O₂•⁻ + 2 H⁺ → H₂O₂ + O₂: образовавшийся пероксид водорода должен затем удаляться другими системами. IDH2 образует NADPH при превращении изоцитрата в α-кетоглутарат; NADPH, в свою очередь, используется глутатионредуктазой для восстановления окисленного глутатиона. Это конкретная цепь поддержания редокс-баланса, а не буквальное исчезновение всех активных форм кислорода.
Работы с генетическим выключением SIRT3 и с ограничением калорийности помогают устанавливать эти функции в клетках и животных. Изменения дыхательной цепи, проницаемости митохондриальных мембран и высвобождения цитохрома c имеют значение для повреждения и апоптоза, но не доказывают, что капсула апигенина предотвращает такие события у человека. Для клинического перехода нужны измерения экспозиции, активности пути и значимого исхода в одной популяции. Пока эти звенья не соединены, механистическую карту полезно использовать как объяснение биологии, а не как обещание роста ATP или продления жизни.
NF-κB — семейство транскрипционных регуляторов, через которое клетки координируют многие иммунные и стрессовые ответы. В классическом варианте комплекс IKK фосфорилирует ингибитор IκBα, что способствует его деградации и позволяет NF-κB, часто в виде p50/p65, воздействовать на транскрипцию в ядре. Эта последовательность описывает общий путь, а не полный механизм каждого воспалительного заболевания. В разных моделях апигенин влиял на отдельные этапы этой системы, причём результаты не всегда совпадали.
В опытах с LPS-активированными мышиными макрофагами апигенин снижал экспрессию COX-2 и iNOS, а также связанные транскрипционные ответы. COX-2 участвует в образовании простаноидов, включая PGE₂, тогда как iNOS/NOS2 обеспечивает индуцируемое образование NO. При совместном избытке NO и супероксида возможна реакция NO• + O₂•⁻ → ONOO⁻, но NO имеет и нормальные сигнальные функции. Уменьшение продукции в воспалительной культуре не означает полезного подавления всех этих веществ во всём организме.
В другой первичной работе, включавшей человеческие моноциты и мышиные макрофаги, снижение провоспалительных ответов сопровождалось уменьшением фосфорилирования p65 по Ser536. При этом деградация IκBα продолжалась, а связывание NF-κB с ДНК не исчезало. Сходное отсутствие блока ряда ранних этапов описано и при TNF-стимуляции в отдельной работе с родственными флавоноидами. Следовательно, апигенин нельзя представлять универсальным выключателем IKK, ядерного транспорта и связывания с ДНК одновременно.
Снижение экспрессии COX-2 в клетках также не устанавливает селективность лекарственного уровня и не доказывает отсутствие желудочно-кишечных рисков по сравнению с противовоспалительными препаратами. Защитный результат в мышиной модели LPS-индуцированной летальности не равен лечению сепсиса у человека. Для специалиста важно различать три уровня: изменение сигнального белка, уменьшение продукции медиатора и улучшение исхода заболевания. Между ними возможна связь, но каждый переход требует собственного исследования.
Для микроглии имеется экспериментальная работа, в которой апигенин и лютеолин уменьшали IFN-γ-индуцированную экспрессию CD40 через влияние на STAT1. Исследовали клеточную линию и первичные микроглиальные культуры, а также воспалительные медиаторы, включая IL-6 и TNF. Это не доказательство клинической перестройки микроглии из «M1» в «M2» и не работа о единственном универсальном пути STAT3. Реальные микроглиальные состояния разнообразнее двух полюсов, поэтому практический вывод здесь — перспективная исследовательская мишень с ещё не установленной терапевтической применимостью.
Плохое растворение агликона делает состав препарата существенным, но улучшение одного этапа не устраняет остальные. Для растворения частиц часто используют соотношение Нойеса—Уитни: dm/dt = D × A × (Cs − C) / h. В нём dm/dt — скорость перехода вещества в раствор, D — коэффициент диффузии, A — доступная поверхность частиц, Cs — концентрация насыщения, C — текущая концентрация, h — эффективная толщина диффузионного слоя. Измельчение способно увеличить A, однако агрегация частиц и свойства среды могут менять ожидаемый результат.
Фосфолипидные комплексы и липосомальные системы используют другую логику: изменяют взаимодействие вещества с водной и липидной средой. В эксперименте с апигенин-фосфолипидным комплексом APLC растворимость увеличилась более чем в 36 раз относительно исследованного свободного вещества; дальнейшую фармакокинетику и антиоксидантные показатели изучали у животных. Это результат конкретного состава, а не гарантированное преимущество любой банки с надписью «фитосома». Для липосом также важны размер, стабильность, доля инкапсулированного вещества и поведение после приёма внутрь, а не один предполагаемый диапазон нанометров.
Даже повышение площади под кривой концентрации не обязательно повышает полезный клинический эффект. Нужно знать, измеряли ли исходную молекулу или конъюгаты, в какой популяции и насколько изменились безопасность и доступ к ткани-мишени. Пероральная липидная форма не получает автоматического права «обойти печень», а кратность экспозиции из опыта на крысах нельзя переносить на человека без исследования. Поэтому заявления об увеличении человеческой биодоступности в 3,5–5,2 раза или о достижении мозговой терапевтической концентрации требуют данных именно для указанного продукта.
Практически оценка начинается с идентичности состава и цели использования. Пищевая форма, ромашковый экстракт и очищенный апигенин должны рассматриваться раздельно; маркировка должна позволять понять, какой компонент и в каком количестве имеется в виду. Для специалиста следующий вопрос — есть ли человеческое исследование этой формы с соответствующим исходом, а не только лабораторная растворимость. Без такого исследования технология доставки остаётся фармацевтическим свойством, а не подтверждённым протоколом лечения.
Апигенин нередко объединяют с магнием, L-теанином или глицином в «стек для сна». Однако совместное описание молекул, действующих на нервную систему, не доказывает эффективность или безопасность готовой смеси. Для комбинации важны конкретные формы, дозы, время приёма и клинический исход; полноценного основания назначать такой стек из приведённых экспериментов нет. Если одновременно меняются несколько добавок, субъективное улучшение или нежелательный эффект трудно отнести к одному компоненту.
Магний участвует в физиологической регуляции NMDA-канала, включая потенциал-зависимый блок, но приём соли магния не равен направленному усилению этого блока в мозге. L-теанин нельзя описывать как установленный избирательный антагонист NMDA, а глицин является коагонистом NMDA-рецептора и отдельно действует через глициновые рецепторы. Поэтому простой рисунок, где все три вещества одинаково «гасят возбуждение», биологически неверен. Наличие отдельных исследований другого компонента также не подтверждает совместный эффект именно с апигенином.
Для NAD⁺ логика сочетаний строится вокруг баланса синтеза и расходования. Никотинамид, NAM, через NAMPT и с использованием PRPP превращается в NMN; никотинамидрибозид, NR, может фосфорилироваться NMRK до NMN. Затем NMNAT использует ATP для образования NAD⁺ и пирофосфата: NMN + ATP → NAD⁺ + PPi. Эти пути объясняют биохимию предшественников, но не означают, что любая пероральная молекула напрямую и одинаково пополняет каждый тканевой пул.
Полные реакции ранних ступеней имеют вид NAM + PRPP → NMN + PPi для NAMPT и NR + ATP → NMN + ADP для NMRK. Сиртуины и PARP, как и CD38, расходуют NAD⁺, но выполняют разные функции и не образуют единый переключатель клеточного состояния. Поэтому синтез из предшественников, распределение по компартментам и активность каждого потребителя нужно рассматривать отдельно.
Часть никотинамида может метилироваться ферментом NNMT: NAM + SAM → 1-метилникотинамид + SAH. Здесь донором метильной группы служит S-аденозилметионин, SAM, а не триметилглицин. Бетаин, или TMG, участвует в другой реакции, катализируемой BHMT преимущественно в печени и почках: бетаин + гомоцистеин → диметилглицин + метионин. Связь через обмен метионина не делает TMG прямым кофактором NNMT и не устанавливает обязательную потребность принимать его вместе с предшественниками NAD⁺.
Потенциальное ограничение расходования NAD⁺ апигенином и увеличение синтеза предшественниками представляют проверяемую гипотезу, а не доказанную терапевтическую синергию. Та же осторожность нужна для ресвератрола: исследования прямой активации SIRT1 зависели от используемого субстрата и строения тестовой системы. Работы с немодифицированными субстратами и опыты, поддерживающие контекстную аллостерическую активацию, нельзя свести к лозунгу «ресвератрол включает SIRT1». Клинически проверенного сочетания апигенин–NMN/NR–ресвератрол–TMG для продления жизни или профилактики нейродегенерации эти данные не создают.
Для очищенного апигенина не установлен общепринятый человеческий терапевтический диапазон для бессонницы, тревоги или сохранения NAD⁺. Поэтому дозы 50–100 мг «для сна» и 250–500 мг «для CD38» нельзя подавать как проверенные клинические протоколы. Время приёма за 45–60 минут до сна также не выводится из пищевой кинетики с поздним плазменным пиком или из внутрибрюшинного опыта у мышей. Разные формы могут менять экспозицию, но пока не дают основания самостоятельно вычислять терапевтическое окно по IC₅₀.
| Задача | Что действительно имеется | Чего пока недостаточно |
|---|---|---|
| Улучшение сна | Пилотное исследование определённого ромашкового экстракта | Воспроизводимого преимущества и режима чистого апигенина |
| Уменьшение тревоги | Небольшие исследования экстракта у пациентов с ГТР | Эквивалентности экстракта и апигенина; универсального назначения |
| Поддержание NAD⁺ | Ферментные, клеточные и мышиные данные | Клинического исхода и безопасной эффективной пероральной дозы |
| Снижение нейровоспаления | Изменение сигнализации в экспериментальных моделях | Доказанного лечения неврологического заболевания |
В лабораторном исследовании апигенин подавлял метаболизм лозартана через CYP2C9; IC₅₀ в человеческих печёночных микросомах составляла 4,10 мкмоль/л. В другом тесте с диклофенаком наблюдали конкурентное подавление CYP2C9 с IC₅₀ 9,51 мкмоль/л. Это не измеренная величина взаимодействия у принимающего капсулу пациента, но важный сигнал при обсуждении концентрированных добавок и препаратов с узким диапазоном безопасности. Работы о метаболизме апигенина ферментами CYP1A2 и CYP3A4 также нельзя автоматически читать как клиническое доказательство одинакового ингибирования всех этих ферментов.
Официальные сведения о ромашке предупреждают о возможных взаимодействиях с варфарином, некоторыми метаболизируемыми печенью препаратами и седативными средствами. Экстракт и чистый флавон не идентичны, поэтому степень риска для каждого продукта остаётся отдельным вопросом. Если человек принимает антикоагулянт, снотворное, противотревожное средство или несколько лекарств, обсуждать концентрированный апигенин следует с врачом или клиническим фармакологом. Самостоятельно отменять назначенное лечение или устанавливать «безопасный порог взаимодействий» в 300–500 мг из лабораторных данных нельзя.
Для ромашки описаны аллергические реакции, включая редкие тяжёлые, особенно при чувствительности к родственным растениям семейства сложноцветных. Возможны также тошнота или головокружение; обычные пищевые количества не эквивалентны концентрированному препарату. При беременности, грудном вскармливании и у детей достаточных данных для назначения очищенного апигенина нет. Заболевания печени и почек, влияющие на метаболизм и выведение, дополнительно затрудняют переносимость стандартных предположений о дозе.
Низкая острая токсичность в отдельном животном опыте не устанавливает безопасность многомесячного использования у людей. Длительное испытание ромашки исследовало 1500 мг экстракта, а не тысячу миллиграммов апигенина, и включало отобранных пациентов с тревожным расстройством. Отсутствие доказанной зависимости также не равно доказанному отсутствию толерантности, отмены или когнитивных эффектов для всех форм и доз. Эти вопросы следует оставлять открытыми, не превращая недостаток наблюдений в рекламное преимущество.
Для практики апигенин сегодня наиболее полезен как пример того, насколько далеко может разойтись молекулярная правдоподобность и готовность клинического применения. Пища, содержащая флавоны, может входить в разнообразный рацион без попытки достичь лабораторной концентрации отдельного вещества. При выборе добавки разумно сначала определить проблему, оценить лекарства и искать человеческие данные для конкретной формы; при стойкой бессоннице или тревоге приоритетом остаётся полноценная клиническая помощь. Исследования CD38, сиртуинов и воспаления дают содержательные направления для будущей работы, но пока не превращают апигенин в универсальное снотворное, анксиолитик или средство против старения.
Нет. Связывание с рецепторным участком не определяет весь фармакологический профиль. В функциональных опытах действие было неоднородным, а человеческие данные не подтверждают селективный анксиолитик без седативных или других рисков.
Общепринятого режима очищенного апигенина нет. Пилотное испытание ромашкового экстракта не показало значимого преимущества по основным показателям сна. Миллиграммы экстракта нельзя переводить в назначение такой же дозы чистого флавона.
Качественных человеческих данных, подтверждающих увеличение N3 или усиление глимфатических процессов апигенином, нет. Результаты с латентностью сна у крыс и общие представления о физиологии сна не доказывают этих эффектов.
Это концентрация, при которой в заданном анализе активность уменьшалась наполовину. Для апигенина она была около 10–13 мкмоль/л, а не 100–300 нмоль/л. Значение не определяет дозу добавки и не показывает достижение такой концентрации в ткани человека.
Запас NAD⁺ отражает доступность молекулы, а отношение NAD⁺/NADH характеризует часть редокс-состояния. Они зависят от компартмента и способа измерения. Изменение одного показателя не гарантирует изменение другого или клиническую пользу.
Проверенного клинического основания для такого обязательного сочетания нет. Пути синтеза и расходования NAD⁺ объясняют гипотезу, но не доказывают эффективность смеси. TMG участвует в реакции BHMT и не является прямым донором метильной группы для NNMT.
Нет. Для конкретного экспериментального фосфолипидного комплекса улучшили растворимость и исследовали фармакокинетику у животных. Клиническое преимущество требует испытания данного продукта у людей с нужным исходом.
При приёме антикоагулянтов, седативных и других лекарств, заболеваниях печени или почек, беременности и грудном вскармливании нужна индивидуальная оценка. Детям нельзя назначать дозу, рассчитанную по взрослой или животной модели. Ромашка также может вызывать аллергию у чувствительных к сложноцветным.