
S-аденозилметионин: метилдену, нейрохимия және клиникалық қолдану шектері
SAMe алмасуын терең талдау: метионин мен SAH циклі, мембрана фосфолипидтері, моноаминдер, транссульфурация және эпигенетика. Механизмдер депрессия, нейродегенерация, холестаз және остеоартрит зерттеулерімен салыстырылып, дәрілік түрлер мен қауіпсіздік бөлек қаралады.
S-аденозил-L-метионин, немесе SAMe, алмастырылмайтын аминқышқыл метиониннің алмасуын нуклеин қышқылдары, ақуыздар мен липидтердің қасиеттерін өзгертетін реакциялармен байланыстырады. Оның тағы бір атауы — адеметионин. Бұл молекула ағзада түзіледі, сондай-ақ дәрілік препараттар мен қоспаларда қолданылады. Эндогендік SAMe-нің биохимиялық маңызы мен сырттан енгізілген адеметиониннің тиімділігі — екі бөлек мәселе: қажетті реакцияға қатысу заттың түсуін көбейту клиникалық нәтижені жақсартады дегенді білдірмейді.
Невролог, психиатр немесе тамақтану маманы үшін SAMe-ге қызығушылық біркөміртекті алмасудан басталады. Метил топтарының қолжетімділігі тамақтануға, ферменттерге, бауыр жағдайына, фолат цикліне және реакция өнімдерінің әкетілуіне тәуелді. Жүйке жүйесінде бұл үдерістер гендерді реттеумен, фосфолипидтердің алмасуымен және кейбір нейромедиаторлық өзгерістермен байланысты. Бірақ депрессия, когнитивтік төмендеу және ұйқы бұзылыстары метил донорының жетіспеуіне ғана тірелмейді, ал қандағы SAMe мөлшері оның нейрон ішіндегі қолжетімділігін автоматты сипаттамайды.
SAMe нені тасымалдайды және сульфоний орталығы неліктен маңызды
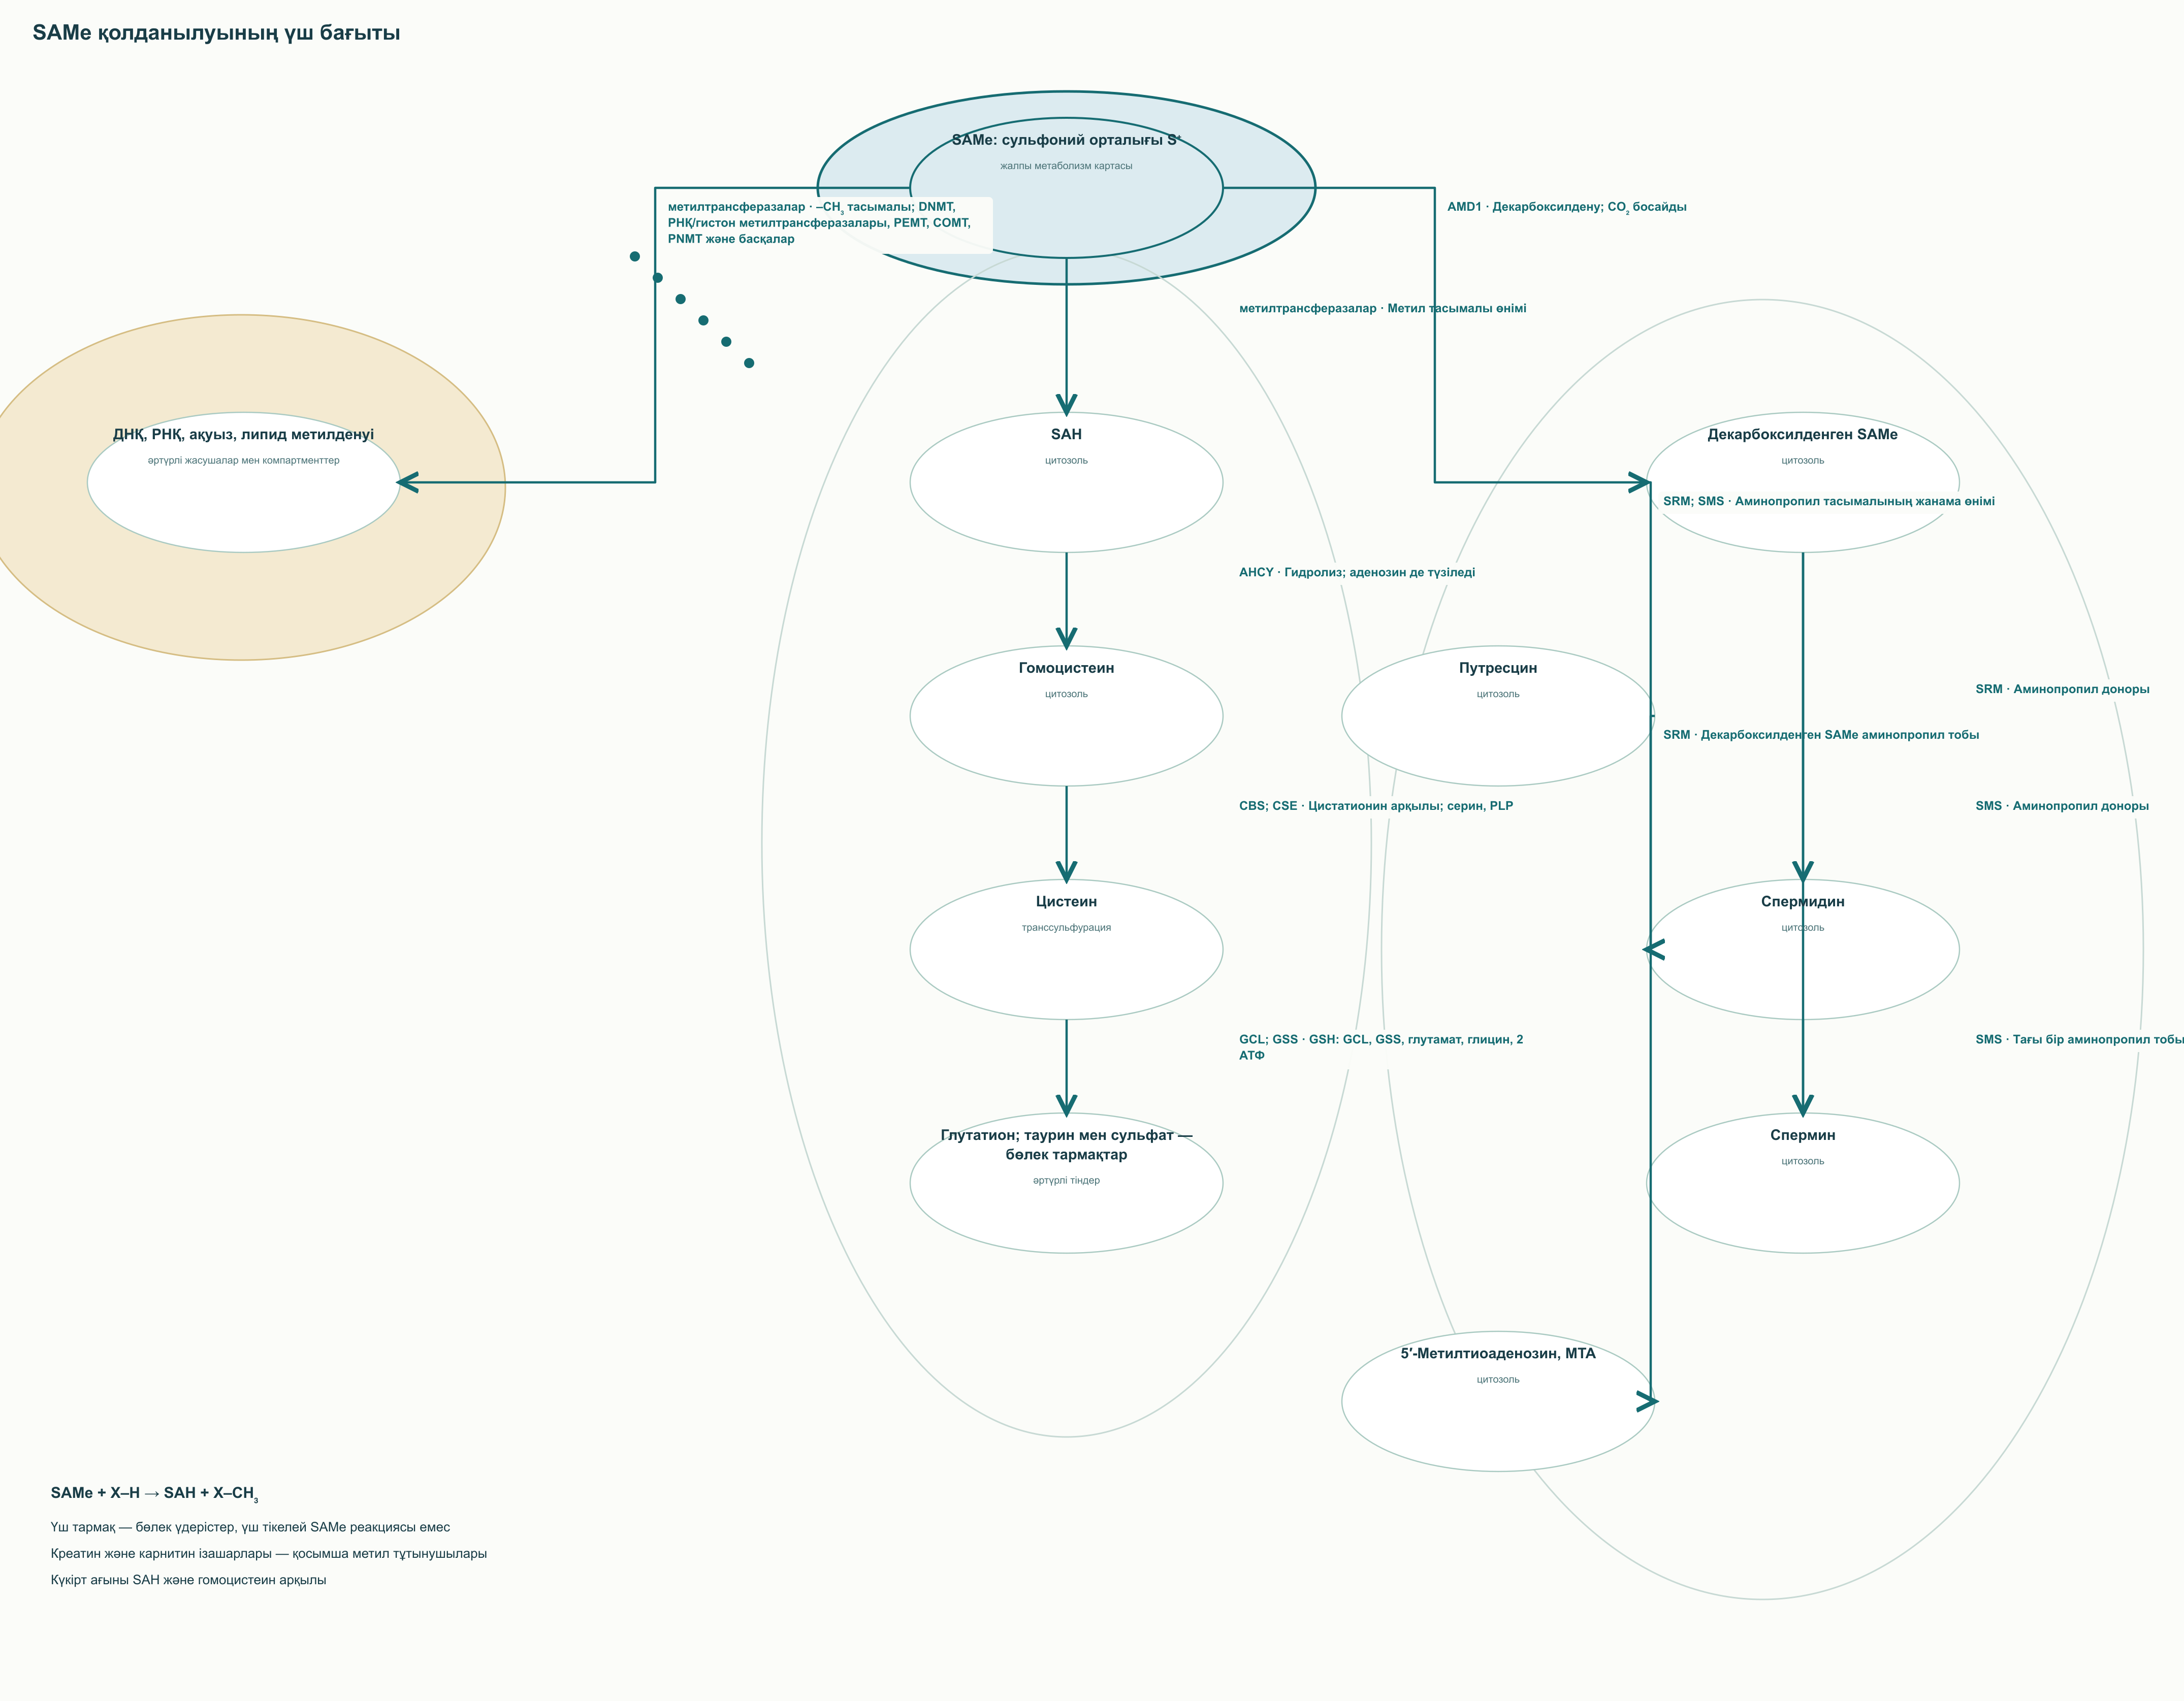
Джулио Кантонидің классикалық тәжірибелері метионин мен АТФ-тен түзілетін белсендірілген метил донорын анықтады. SAMe-де күкірт атомы үш көміртекті орынбасармен байланысып, оң формалдық зарядқа ие. Мұндай сульфоний орталығы оған жалғасқан метил көміртегін нуклеофилдік шабуылға қолжетімді етеді. Қалыпты ферменттік метил тасымалында субстрат нуклеофилі дәл осы көміртекке шабуылдайды; метил тобы акцепторға өтеді, қалған молекула S-аденозилгомоцистеинге, SAH-қа айналады. Сондықтан метилді «кететін топ» деуге болмайды: күкірт арқылы байланысқан қалған фрагмент кетеді.
Жалпы реакцияны SAMe + X–H → SAH + X–CH₃ деп көрсетуге болады. X–H акцептордың функционалдық тобын білдіреді, бірақ бұл жазба барлық метилтрансфераза үшін бірдей қышқыл-негіздік теңгерім орнатпайды. Метил оттек, азот, күкірт немесе көміртек атомына қосылуы мүмкін. Нақты реакцияда субстрат заряды, ферменттің қатысуы және жергілікті орта ескеріледі. Әмбебап деп алынған «метил байланысының гидролиз энергиясын» АТФ гидролизімен салыстыру дұрыс сипаттама бермейді: ағын бағыты реагенттердің концентрациясы мен өнімдердің әкетілуіне де тәуелді.
SAMe тек метилденуге жұмсалмайды. AMD1 ферментімен декарбоксилденгеннен кейін ол спермидин мен спермин түзілуінде аминопропил топтарының доноры болады. Басқа жол метионин циклін гомоцистеин арқылы күкірттің цистеинге берілуімен байланыстырады. SAMe тікелей глутатионға айналмайды: олардың арасында бірнеше реакция бар. Креатиннің, карнитиннің кейбір метилденген ақуыздық ізашарларының синтезі, ДНҚ мен РНҚ метилденуі де метил донорын жұмсайды, бірақ бұл тұтынушылар тіндік таралуы және реттелуі бойынша ерекшеленеді.
SAMe түзілуі: MAT ферменті және тіндер арасындағы айырмашылықтар
Метионин-аденозилтрансфераза, MAT, L-метионин мен АТФ-тен SAMe түзілуін катализдейді. Жиынтық реакция:
L-метионин + АТФ + H₂O → SAMe + PPᵢ + Pᵢ.
PPᵢ — бейорганикалық пирофосфат, Pᵢ — ортофосфат. Метионин күкірті АТФ-тің аденозил бөлігінің 5′ көміртегіне шабуылдайды. Босап шыққан трифосфат кейін каталитикалық үдеріс барысында ыдырайды. Бұл MAT-тың бөлек «триполифосфатазалық субъбірлігінің» жұмысы емес. Каталитикалық орталыққа Mg²⁺ пен K⁺ қатысады; фосфат өнімдерінің кейін әкетілуі жасушада реакция бағытын қолдайды.
Адамның каталитикалық субъбірліктерін MAT1A және MAT2A гендері кодтайды. MAT1A жетілген бауыр үшін ерекше маңызды, ал MAT2A бауырдан тыс кең таралып, жүйке тінінде маңызды рөл атқарады. MAT2B реттеуші ақуызы MAT2A-мен әрекеттеседі. Бұл байланыс SAMe белгілі бір деңгейге жеткенде ферментті толық өшіретін жалғыз тетік емес: тазартылған ақуыз тәжірибелері конструкцияға, кешен құрамына және өлшеу жағдайына тәуелді.
| Түрі | Каталитикалық негізі | Әдеттегі сипаттамасы | Түсіндіру |
|---|---|---|---|
| MAT I | MAT1A кодтайтын субъбірліктер тетрамері | Бауырлық түр; метионинге туыстығы MAT III-тен салыстырмалы жоғары | Ағын бөлінуі үшін маңызды, бірақ зертханалық Kₘ клиникалық шек емес |
| MAT III | Сол MAT1A субъбірлігінің димері | Метионин көбірек түскенде жұмыс істей алатын бауырлық түр | Олигомерлену кинетиканы өзгертеді; қандағы дайын SAMe-ні қармау механизмі емес |
| MAT II | MAT2B-мен әрекеттесетін каталитикалық MAT2A | Бауырдан тыс, соның ішінде ОЖЖ-де кең таралған | Кері байланыс пен тұрақтану тәжірибеде зерттеледі; әмбебап өшу шегі жоқ |
Kₘ — берілген модельде реакция жылдамдығы ең жоғарының жартысына тең болатын субстрат концентрациясы. Ол нақты ферменттік өлшеуді сипаттайды, мидың қоректік тапшылыққа төзімділігін тікелей өлшемейді. Әртүрлі тәжірибенің Kₘ мәндерін жағдайсыз бір кестеге жинап, кейін жұлын-ми сұйықтығындағы метионинмен жасушаішілік деңгей сияқты салыстыруға болмайды. Ликвор, плазма, цитозоль және ядро — әртүрлі метаболизм ортасы.
Бауыр метионин алмасуында шынымен үлкен рөл атқарады. Бұл бауыр ауруларында біркөміртекті алмасу өзгеретінін түсіндіреді, бірақ MAT III пероральды адеметионинді «кәдеге жаратады» дегенді дәлелдемейді. MAT метиониннен SAMe түзеді; дайын молекуланың сіңуі мен таралуы фармакокинетикалық жолмен анықталуы керек.
Метионин циклі, SAH және SAMe/SAH қатынасының мағынасы
Метилденуден кейін SAH пайда болып, көптеген SAMe-тәуелді метилтрансферазаны тежеуі мүмкін. Ол реттеуші маңызы бар қалыпты өнім, әмбебап «аса қауіпті у» емес. Әсері өз концентрациясына, SAMe деңгейіне, нақты фермент сезімталдығына және жасуша компартментіне байланысты. DNMT, PRMT, COMT және басқа ферменттерде барлық реакцияны сипаттайтын ортақ тежеу константасы жоқ.
AHCY кодтайтын SAH-гидролаза қайтымды өзгерісті катализдейді:
SAH + H₂O ⇌ L-гомоцистеин + аденозин.
Оқшауланған жүйеде тепе-теңдік SAH түзілуін қолдайды. Жасушада гидролиз өнімдерді әкетумен сақталады: аденозин аденозинкиназамен АМФ-ке фосфорланады немесе инозинге дезаминденеді, ал гомоцистеин қайта метилденуге не транссульфурацияға жұмсалады. Өнімдердің деңгейі «нөлге жуық» болуы міндетті емес; нақты концентрациялар мен ағындар маңызды. Гомоцистеиннің жиналуы SAH жиналуына ықпал етуі мүмкін, бірақ барлық метилденудің дереу толық тоқтауын білдірмейді.
MTR метионинсинтазасы кобаламиннің қатысуымен 5-метилтетрагидрофолат метилін гомоцистеинге береді. Қарапайым жазбасы: гомоцистеин + 5-MTHF → метионин + тетрагидрофолат. MTRR метионинсинтазаның функционалдық күйін қолдайды, MTHFR 5-MTHF түзілуіне қатысады. Бауыр мен бүйрек қосымша BHMT бетаин-гомоцистеин-метилтрансферазасын пайдаланады: гомоцистеин + бетаин → метионин + диметилглицин. Бұл реакцияны бетаиннің тікелей нейронішілік әсер жолы ретінде салуға болмайды.
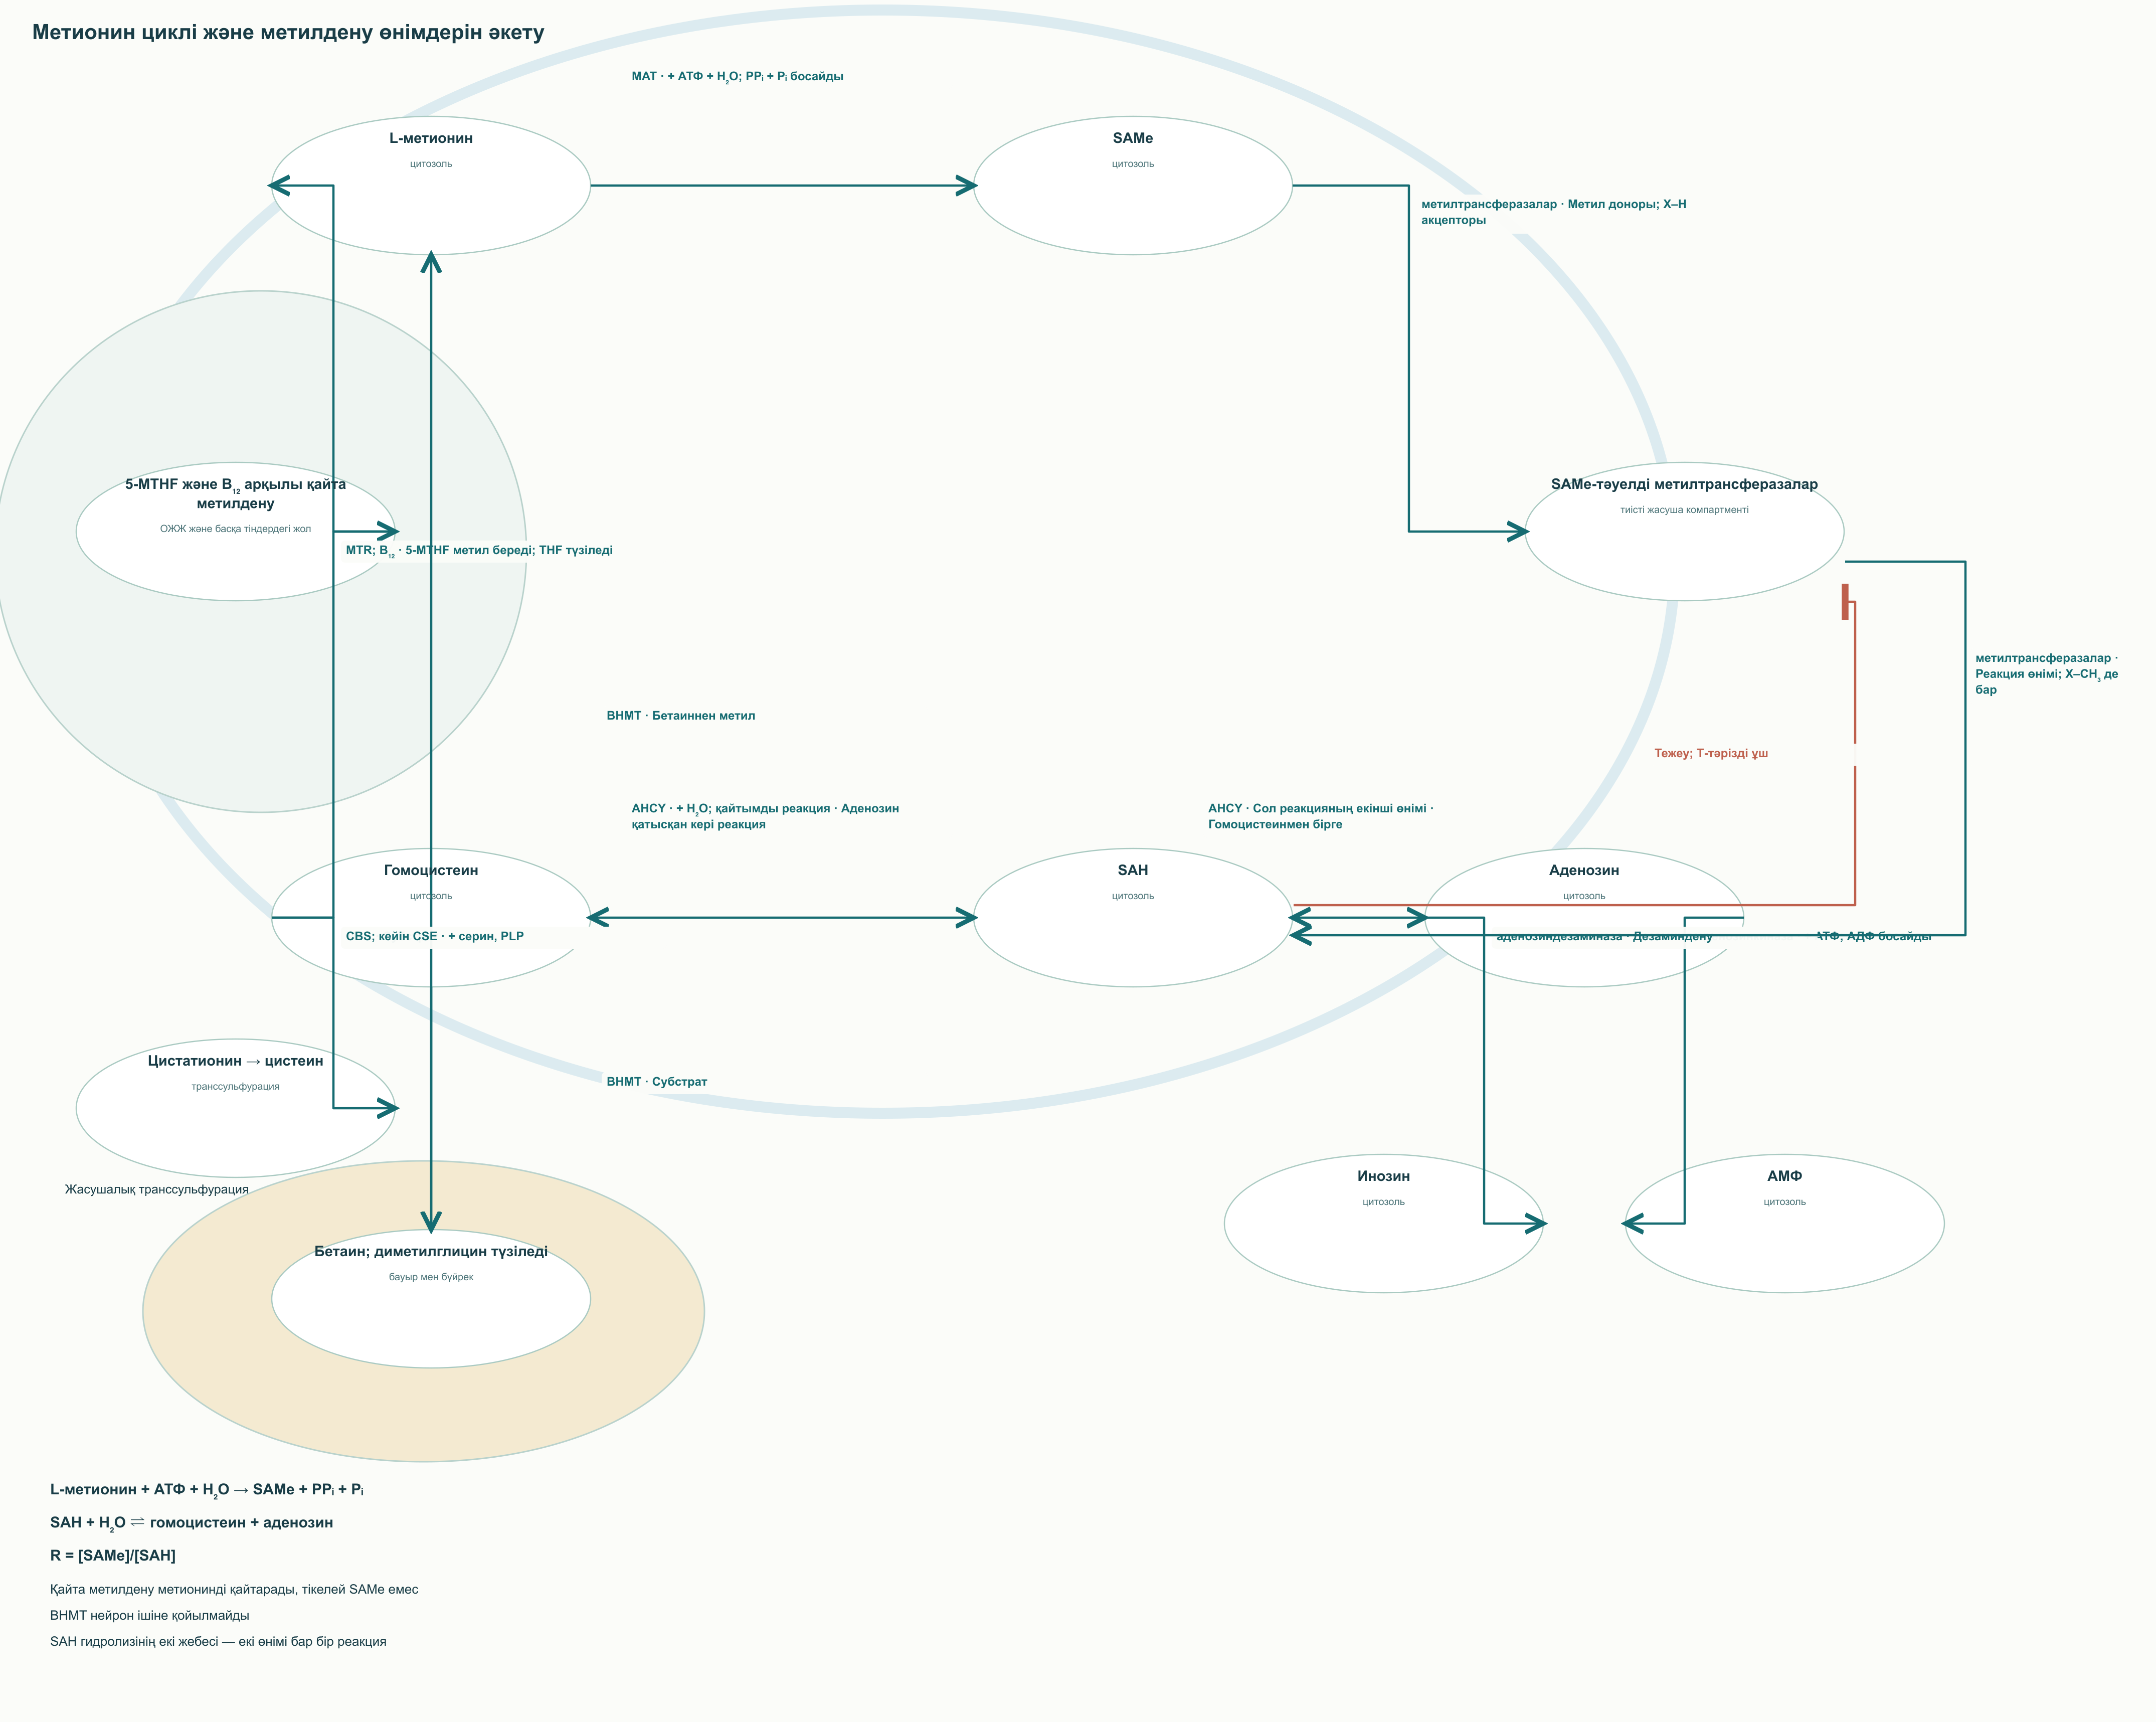
SAMe/SAH қатынасын жиі метилдену әлеуеті деп атайды:
R = [SAMe]/[SAH].
Екі концентрация бірдей бірліктермен берілсе, R өлшемсіз болады. Ол зерттеу ішінде біркөміртекті алмасуды салыстыруға көмектеседі, бірақ жеке метилтрансфераза белсенділігін өлшеуді алмастырмайды. Бірдей қатынас әртүрлі абсолюттік деңгейден шығуы мүмкін, ал тіннің жалпы экстракты ядро, цитозоль және жасуша түрлері арасындағы айырмашылықты жасырады.
Сондықтан 4–6 аралығын «оңтайлы» деу, ал 2-ден төменді «метилдену блокадасы» диагнозы деп қабылдау әмбебап клиникаға жарамайды. Плазма мен ликворға ортақ норма әдіссіз, үлгі дайындаусыз, референстік популяциясыз және нәтижемен расталған байланыссыз белгіленбейді. R өзгерісі өзі депрессияны, мембрана қатаюын немесе ген экспрессиясының нақты үлгісін болжамайды. Промотордың метилденуі транскрипцияны азайтуы мүмкін, бірақ геномның басқа аймақтарындағы ДНҚ және гистон метилденуі әлдеқайда әртүрлі қызмет атқарады.
Маман клиникалық міндеттен бастағаны пайдалы. Макроцитозда, неврологиялық көріністерде, шектеулі тамақтануда немесе мальабсорбция күдігінде B₁₂ мен фолат тапшылығының тиісті себептері бағаланады; гомоцистеин бүйрек, тамақтану және дәрілермен бірге қаралады. MTHFR C677T фолат алмасуына әсер етуі мүмкін, бірақ депрессия диагнозын анықтамайды және SAMe-ге автоматты көрсетілім туғызбайды. SAMe мен SAH зерттеулік өлшемі алдын ала қойылған сұраққа жауап беруі керек, жеке ем мақсатына айналмауы тиіс.
Фосфатидилхолин: PEMT жолы және мембрана биофизикасы
Фосфатидилхолин, PC, және фосфатидилэтаноламин, PE, негізгі мембраналық глицерофосфолипидтерге жатады. Олар синапстық мембраналар мен миелиннің бүкіл құрамын қамтымайды: холестерин, сфинголипидтер және басқа кластар да маңызды. PC Кеннедидің CDP-холин жолымен және PE-нің бірізді метилденуімен түзіледі. Екінші жолда PEMT соңғы бір PC үшін үш SAMe молекуласын жұмсайды.
Аралық өнімдер: PE → PMME → PDME → PC. PMME — фосфатидилмонометилэтаноламин, PDME — фосфатидилдиметилэтаноламин. Әр қадамда SAMe SAH-қа айналады. Жиынтығы: PE + 3 SAMe → PC + 3 SAH. PEMT эндоплазмалық тормен және митохондрияға жанасқан мембраналармен байланысты; сандық рөлі бауырда ең сенімді зерттелген. Кеннеди жолы холин, CTP және диацилглицеролды пайдаланып, көптеген тіндерді PC-мен қамтамасыз етеді.
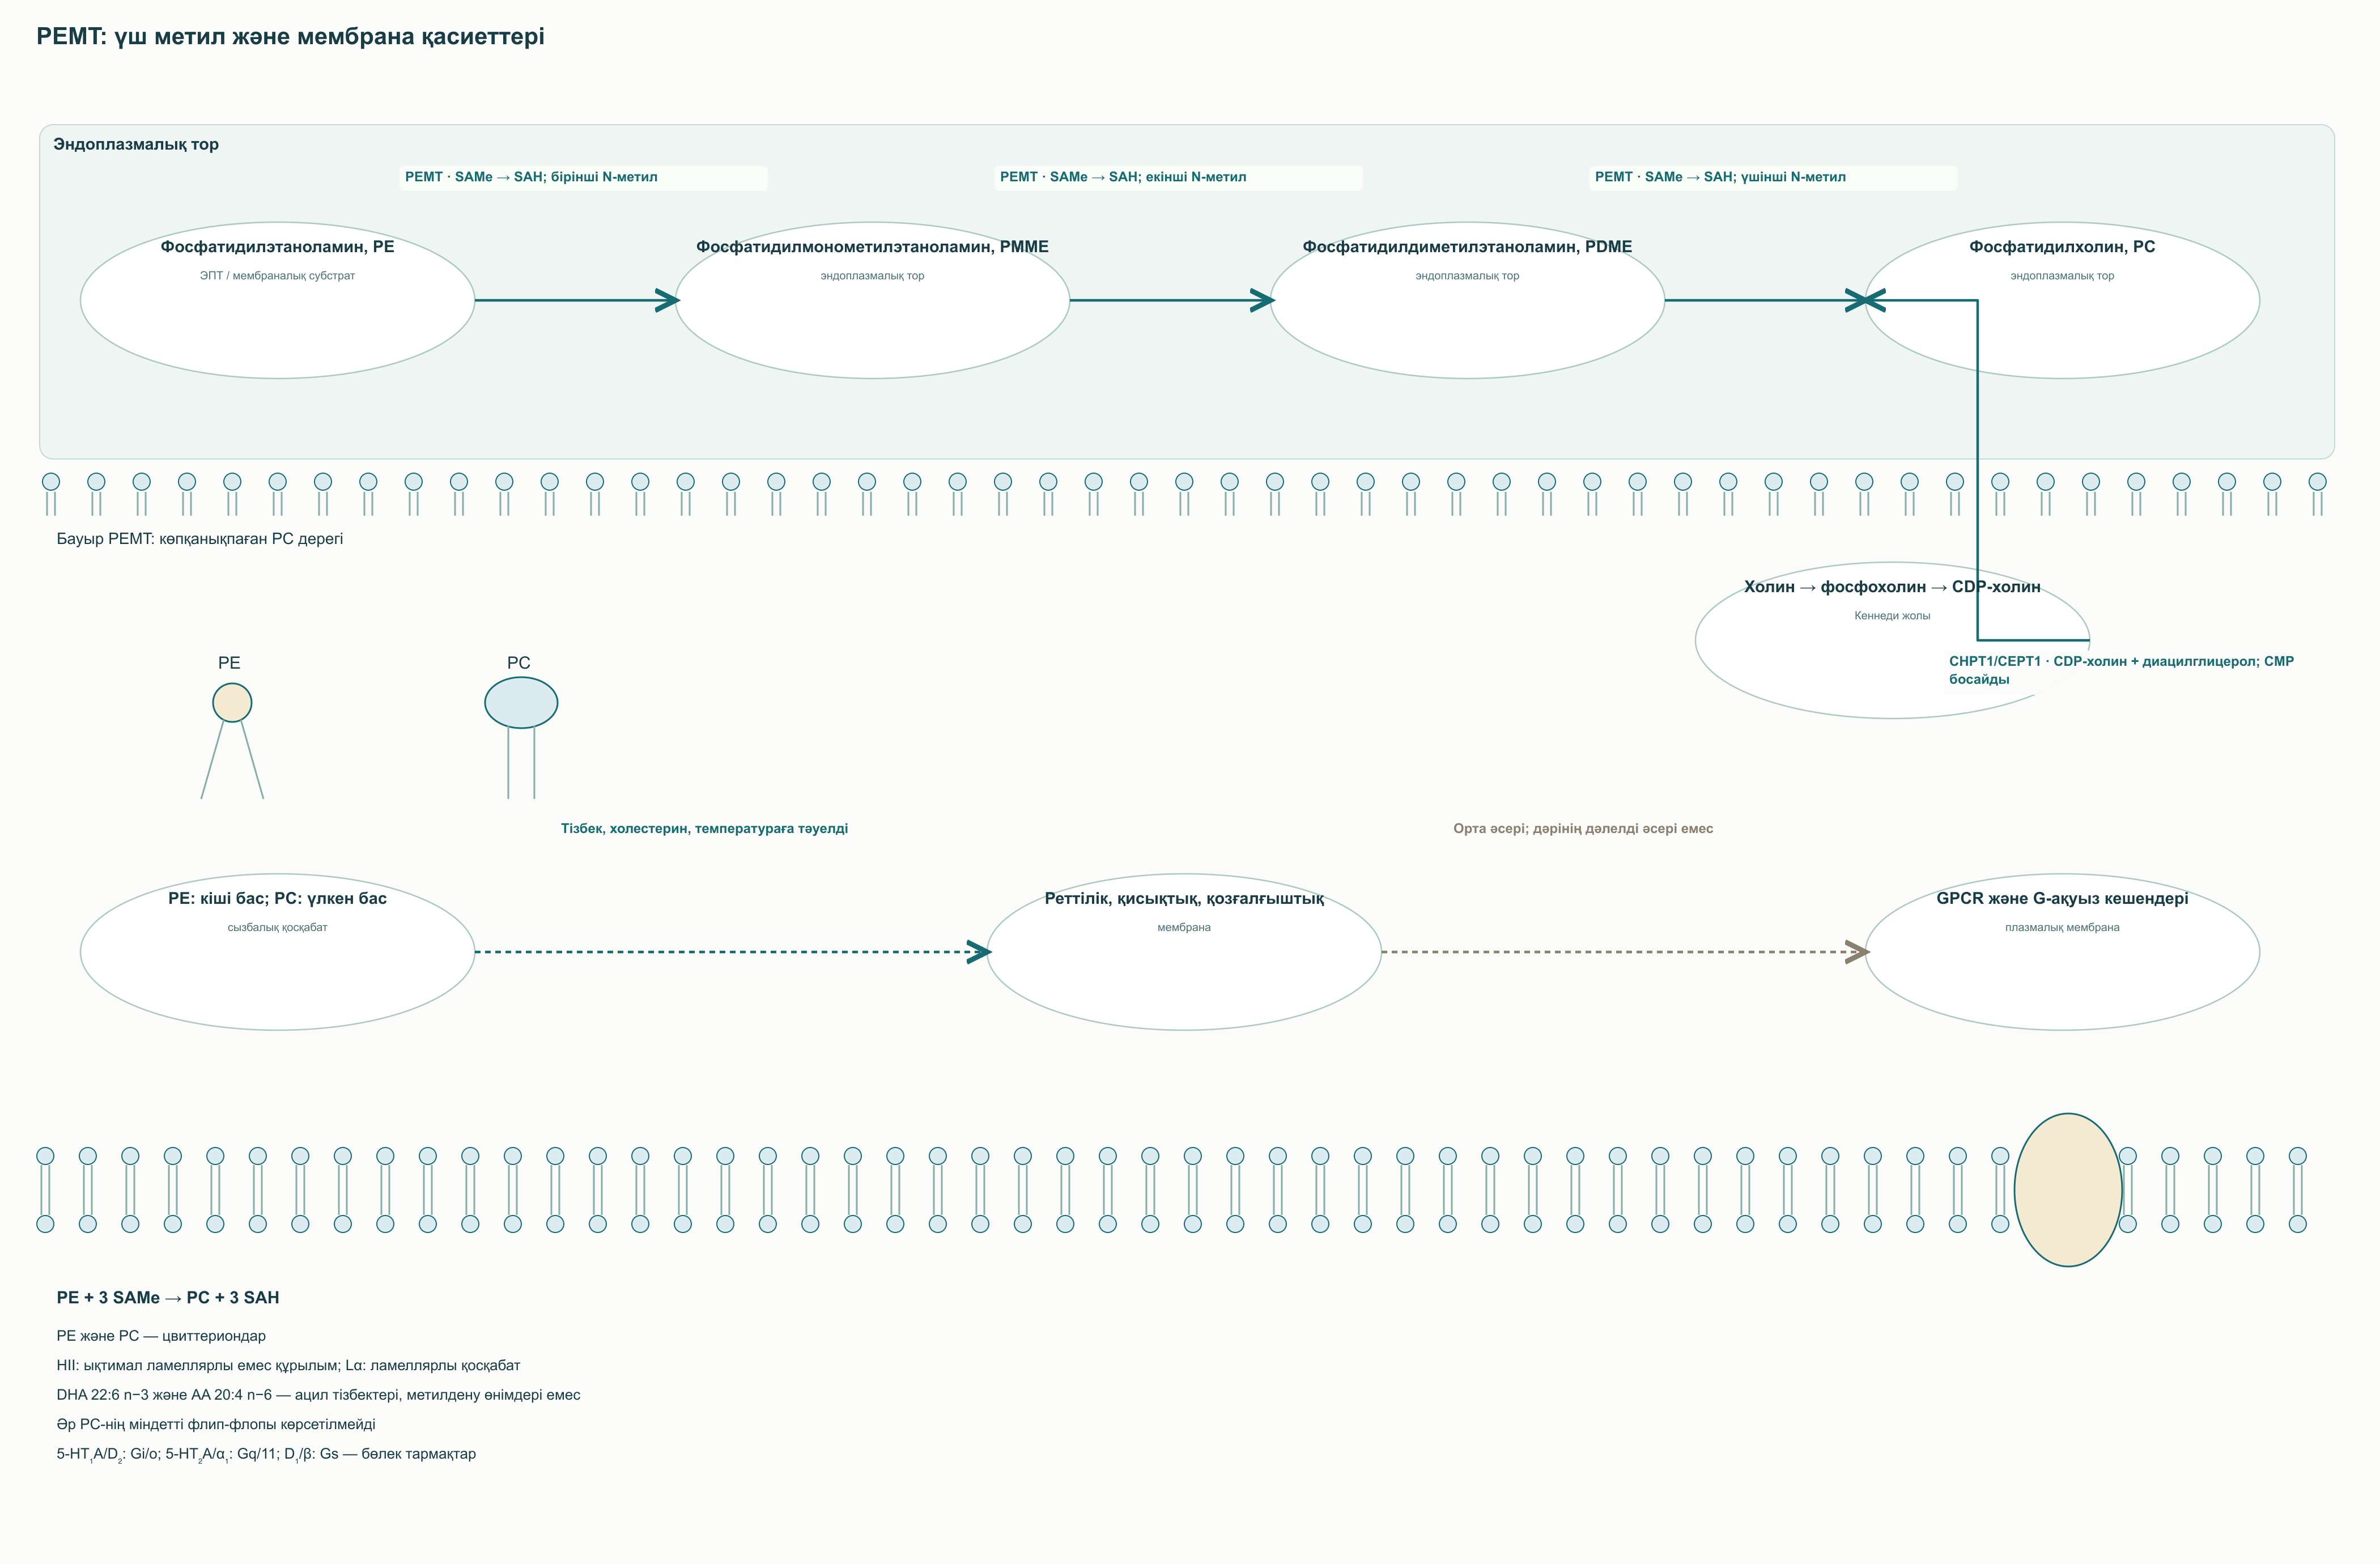
Адамдағы изотоптық зерттеулер бауырлық PEMT жолы кейбір көпқанықпаған PC түрлерін, әсіресе докозагексаен қышқылы DHA, 22:6 n−3 барларын басым түзетінін көрсетті. Маңызды май қышқылдарына арахидон қышқылы, 20:4 n−6 да жатады. PE басының метилденуі DHA не арахидон қышқылын синтездемейді. Ацил тізбектері қолжетімді субстраттар мен липидтердің қайта құрылуына тәуелді. Кеннеди жолын тек қаныққан PC көзі, бауыр өлшемдерін синапстағы дәл сол ағынның дәлелі деуге болмайды.
PC және PE бастары физиологиялық жағдайда цвиттерионды: оң және теріс зарядтары бар, жалпы заряды шамамен нөл. PE-нің салыстырмалы шағын басы тиісті жағдайда теріс қисықтық пен ламеллярлы емес HⅡ құрылымдарға ықпал етеді. PC басы үлкенірек, көптеген түрлері ламеллярлы Lα қосқабатын қолдайды. Модель мембрананың иілуі мен бірігуін түсіндіруге пайдалы, бірақ барлық PE-ні «қаттылық», PC-ні жоғары сұйықтық деп теңестіруге болмайды. Тізбек ұзындығы, қанықпауы, холестерин, температура мен ақуыздық орта нәтижені өзгертеді.
Эритроцит мембранасындағы тарихи тәжірибелерде PE метилденуі мембрана қозғалғыштығын арттырған. Мембрана препараттары мен синаптосомалар жұмыстары фосфолипид метилденуі мен сигнал байланысы туралы гипотеза туғызды. Бірақ SAMe-ден кейін анизотропияның әмбебап 18–25% кемуі адам миында анықталмаған. DPH флуоресценттік зонды нақты тәжірибедегі айналмалы қозғалыс пен орта реттілігін сипаттайды; ол барлық ақуыздың бүйірлік диффузиясын немесе мидың клиникалық «икемділігін» тікелей өлшемейді.
Липидтік рафттар және басқа домендер ақуыз серіктестерінің қолжетімділігі мен сигналдық кешен ұйымдасуын өзгертеді. 5-HT₁A, 5-HT₂A, D₁, D₂, α₁ және β-адренорецепторлар әртүрлі G-ақуыздар мен эффекторлар арқылы жұмыс істейді. цАМФ аденилатциклазадан, IP₃ және DAG фосфолипаза C-ден туындайды; бәрін бір жолға біріктіруге болмайды. Рецептор алдын ала ұйымдасқан кешенмен әрекеттесе алады, сондықтан әр сигнал ұзақ мембраналық қозғалысты қажет етпейді. SAMe адамның осы рецепторларының Bₘₐₓ-ын қалпына келтіретіні немесе G-ақуыздардан ажырауын міндетті жоятыны дәлелденбеген.
Моноаминдер: тікелей метилдену және жанама байланыстар
SAMe кейбір моноамин өзгерістерінде тікелей жұмсалады, бірақ L-ДОФА-дан дофамин не 5-HTP-ден серотонин түзу субстраты емес. Механизмді талдауда төрт үдеріс ажыратылады: медиатор синтезі, тасымал мен босау, рецепторлық сигнал және метаболизмдік инактивация. Бір үдерістің өзгеруі синапстағы соңғы мөлшерді бірмәнді анықтамайды.
Норадреналин және адреналин
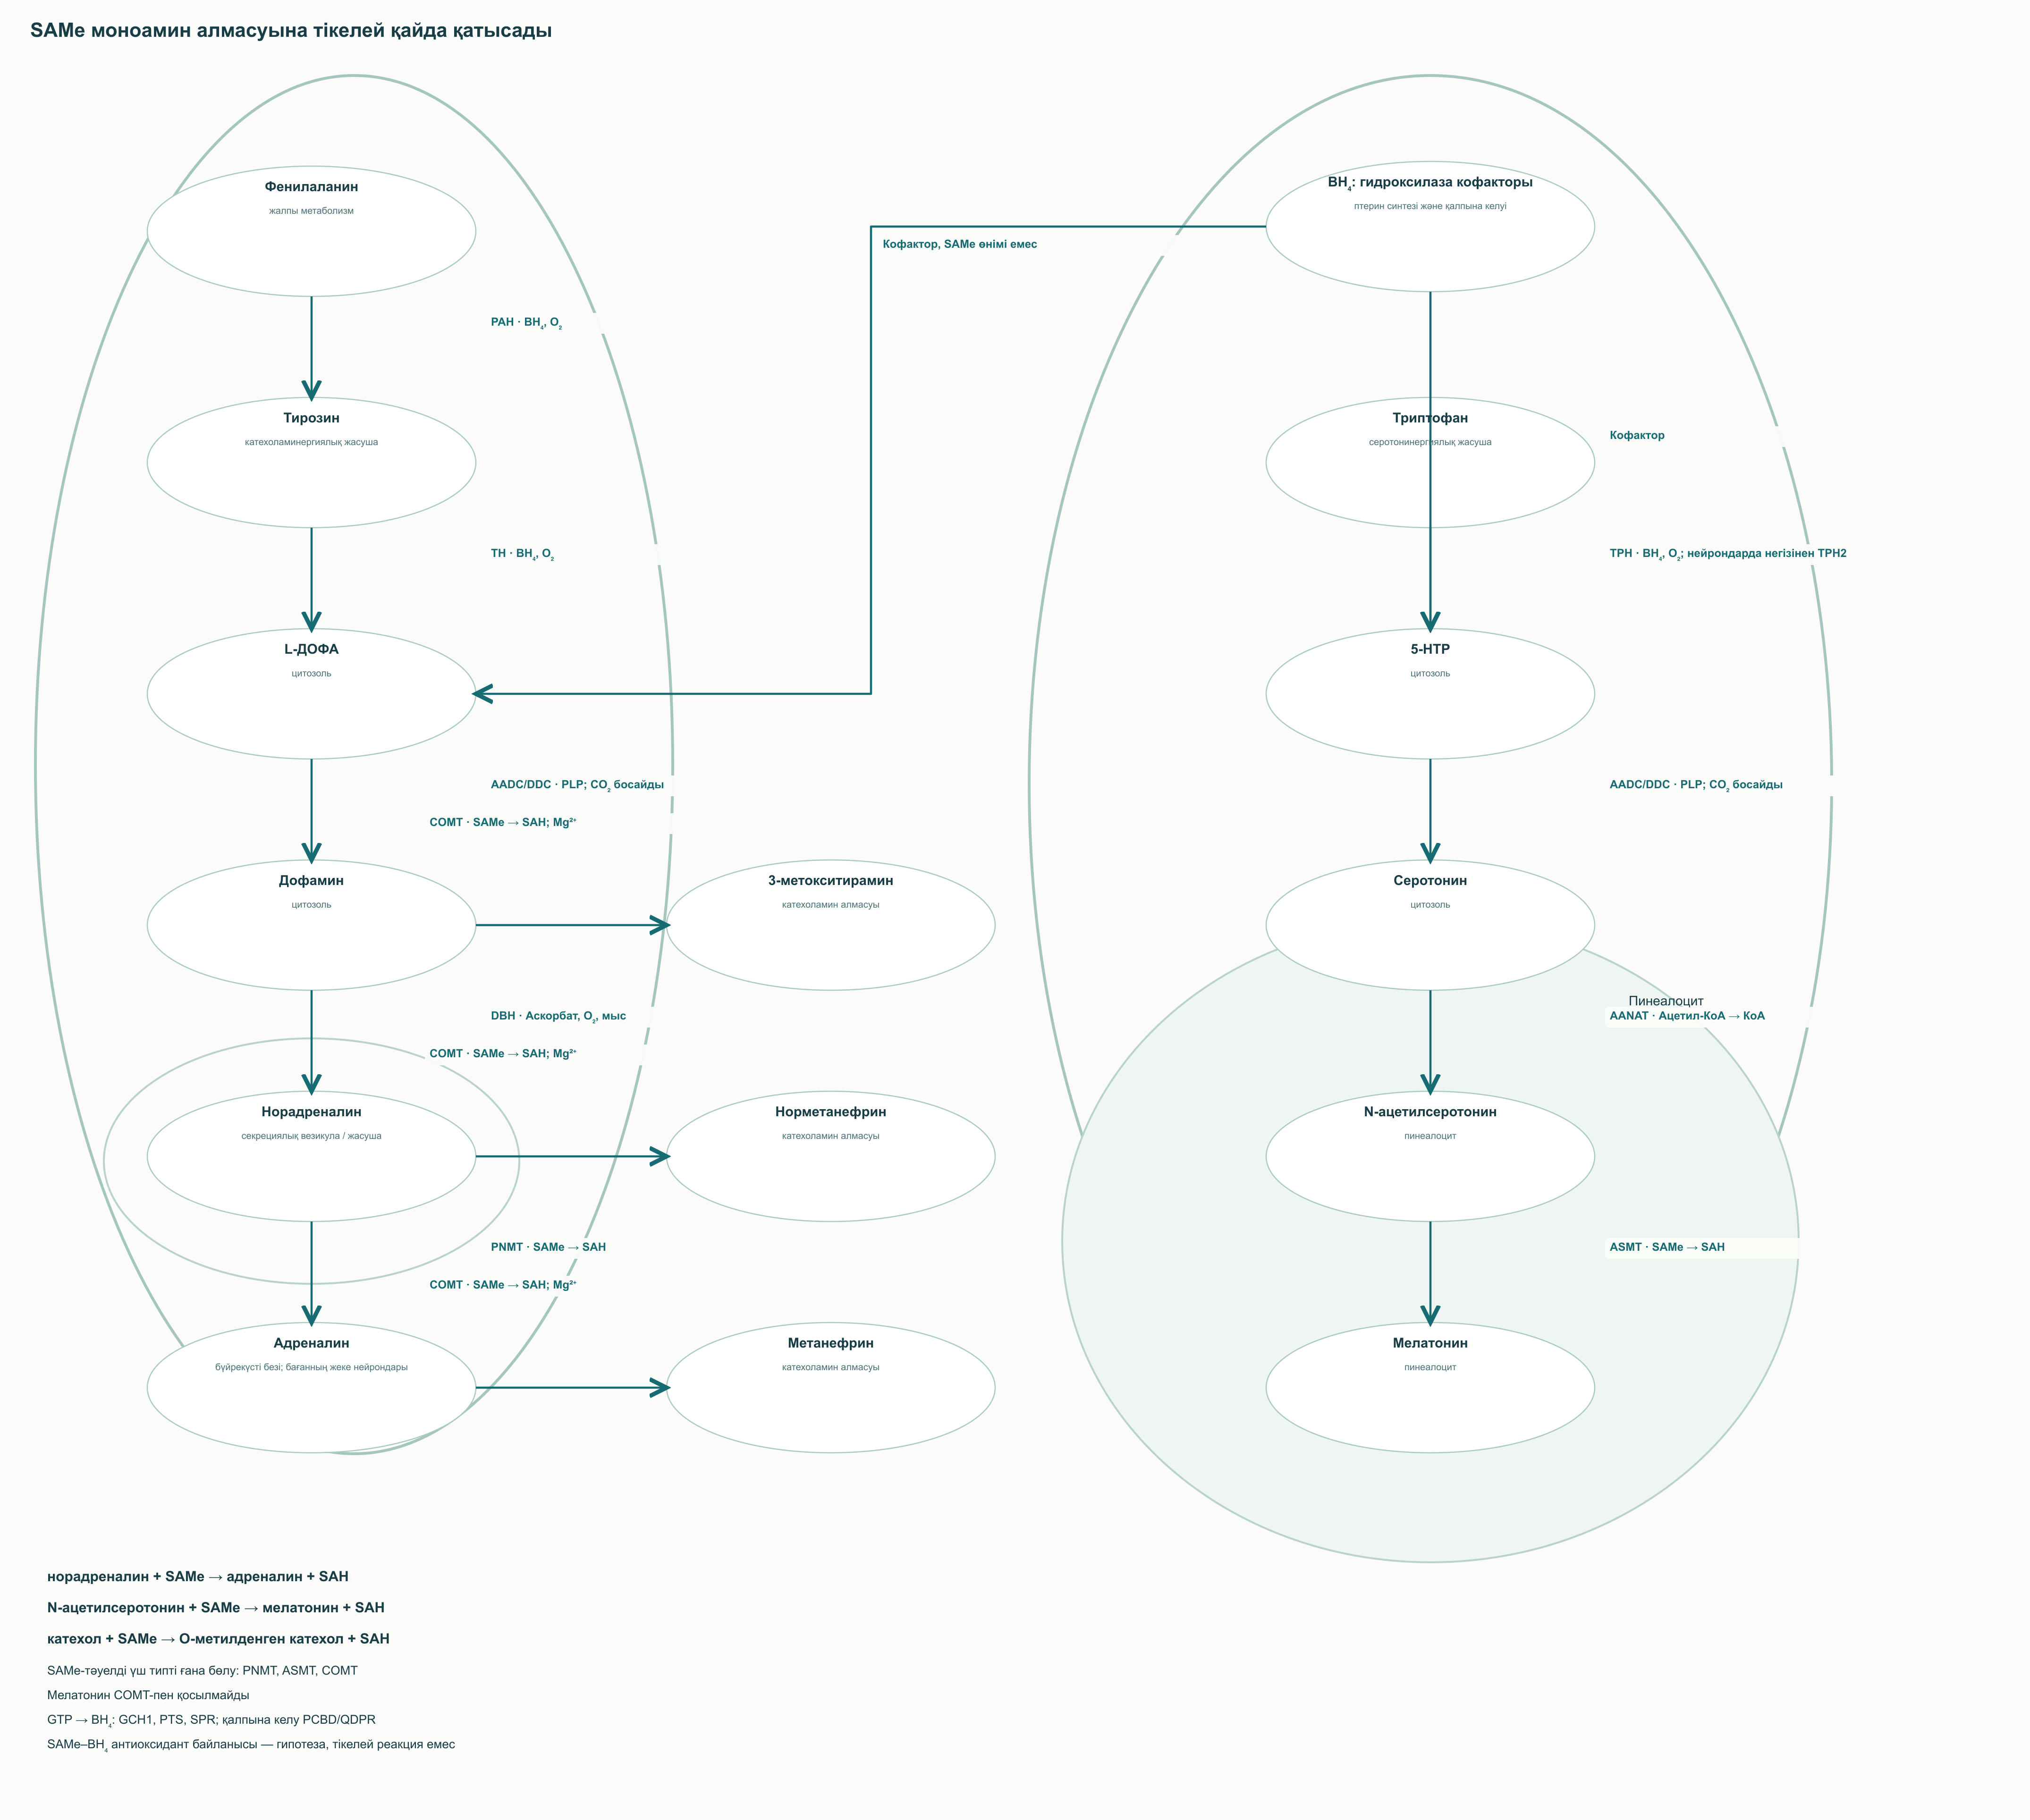
Фенилэтаноламин-N-метилтрансфераза PNMT метилді норадреналин азотына береді:
норадреналин + SAMe → адреналин + SAH.
Бұл бүйрекүсті безінің милы қабаты мен ми бағанының шағын адренергиялық нейрон популяциялары үшін маңызды. C₁, C₂ және C₃ — бөлек топтар; бәрін бір ростралды вентролатералды аймаққа орналастыруға болмайды. SAMe қатысуы күнделікті шаршау не психомоторлық баяулауды PNMT тапшылығы туғызатынын дәлелдемейді және адеметионинді тамыр тонусын түзету құралы етпейді. Расталмаған жалғыз PNMT тежеу константасын клиникада қолдануға болмайды.
Тетрагидробиоптерин және гидроксилазалар
TH тирозингидроксилазасы тирозиннен L-ДОФА, TPH триптофангидроксилазасы триптофаннан 5-HTP түзеді. Екеуі де тетрагидробиоптеринді, BH₄, молекулалық оттек пен белсенді орталық темірін пайдаланады. BH₄ GTP-ден GCH1, PTS және SPR арқылы синтезделіп, гидроксилденуден соң PCBD/QDPR жүйесімен қалпына келеді. Бұл жолдардың бұзылысы кофактордың моноамин алмасуындағы маңызын көрсетеді.
Тотығу стрессі тотықсызданған птерин қолжетімділігін өзгерте алады. BH₄/BH₂ және «ажырау» рөлі әсіресе NO-синтазаларда зерттелген; дәл осы механизмді TH және TPH-ға автоматты көшіруге немесе BH₂ бәсекесін қайтымсыз деуге болмайды. SAMe-нің тиол алмасуымен байланысы редокс ортаға әсерді қисынды етеді, бірақ ішкеннен кейін BH₄-тің тікелей клиникалық маңызды қалпына келуі дәлелденбеген. GCH1 реттеуші аймақтарын метилдеу де міндетті белсену емес: бағыт аймақ пен жасушаға тәуелді.
Серотонин және мелатонин
Эпифизде AANAT серотонинді ацетил-КоА арқылы ацетилдеп, N-ацетилсеротонин түзеді. Бұрын HIOMT аталған ASMT кейін 5-гидроксил тобының оттегіне метил береді:
N-ацетилсеротонин + SAMe → мелатонин + SAH.
SAMe-ге тәуелділік биохимиялық және құрылымдық деректермен расталған. Бірақ мелатониннің тәуліктік ырғағы жарыққа, симпатикалық реттелуге, AANAT белсенділігі мен эпифиз күйіне де тәуелді. Ұйқысыздық не ангедония SAMe тапшылығын диагностикаламайды, ал ASMT қатысуы адеметиониннің ұйқы бұзылысына тиімділігін дәлелдемейді.
COMT және катехоламиндердің клиренсі
Катехол-O-метилтрансфераза COMT SAMe мен Mg²⁺ пайдаланып, катехол тобын метилдейді. Дофамин 3-метокситираминге, норадреналин норметанефринге, адреналин метанефринге айналуы мүмкін. Кейінгі ыдырауға басқа ферменттер, соның ішінде моноаминоксидазалар қатысады. Серотонин мен мелатонин катехоламин емес, оларды ортақ «COMT инактивациясы» жебесіне қоюға болмайды.
Префронталды қыртыста DAT кейбір басқа аймақтардан азырақ, бірақ толық жоқ емес. Норадреналин тасымалдағышы, диффузия мен метаболизм де маңызды. COMT үлесін адамда үнемі 60%-дан жоғары деу аймақ пен әдісті ескермейді. rs4680 мембранамен байланысқан COMT-тің Val158Met нұсқасына сәйкес келіп, тұрақтылық пен белсенділікке әсер етеді. Дерек әр тасымалдаушыға әмбебап қатынас бермейді және бір генотиппен SAMe таңдауға негіз емес. COMT инактивацияға қатысатындықтан, көп метил доноры көп дофамин не жақсы жұмыс жадына тең емес.
Транссульфурация: гомоцистеиннен цистеин мен глутатионға
Гомоцистеин метионинді сақтау мен оның күкіртін пайдалану тармақтарының торабында орналасады. CBS цистатионин-β-синтазасы гомоцистеин мен серинді қосады: гомоцистеин + серин → цистатионин + H₂O. CTH кодтайтын CSE цистатионин-γ-лиазасы кейін цистеин, α-кетобутират және аммиак түзеді. Суды есептеген екінші кезең: цистатионин + H₂O → цистеин + α-кетобутират + NH₃. pH-қа қарай аммиак негізінен NH₄⁺ күйінде; қысқа сызба басқа өнімдерді жасырмауы керек.
Екі фермент те B₆ туындысы пиридоксаль-5′-фосфатты, PLP-ті пайдаланады. CBS құрамында гем және Бейтман реттеуші домені бар. SAMe оған байланысып, каталитикалық және реттеуші бөліктердің байланысын өзгерту арқылы белсенділікті арттыра алады. Бұл адам ферментінің құрылымдық зерттеулерімен расталған. Бірақ пробиркадағы өсім нақты пероральды дозадан кейінгі транссульфурацияны болжамайды.
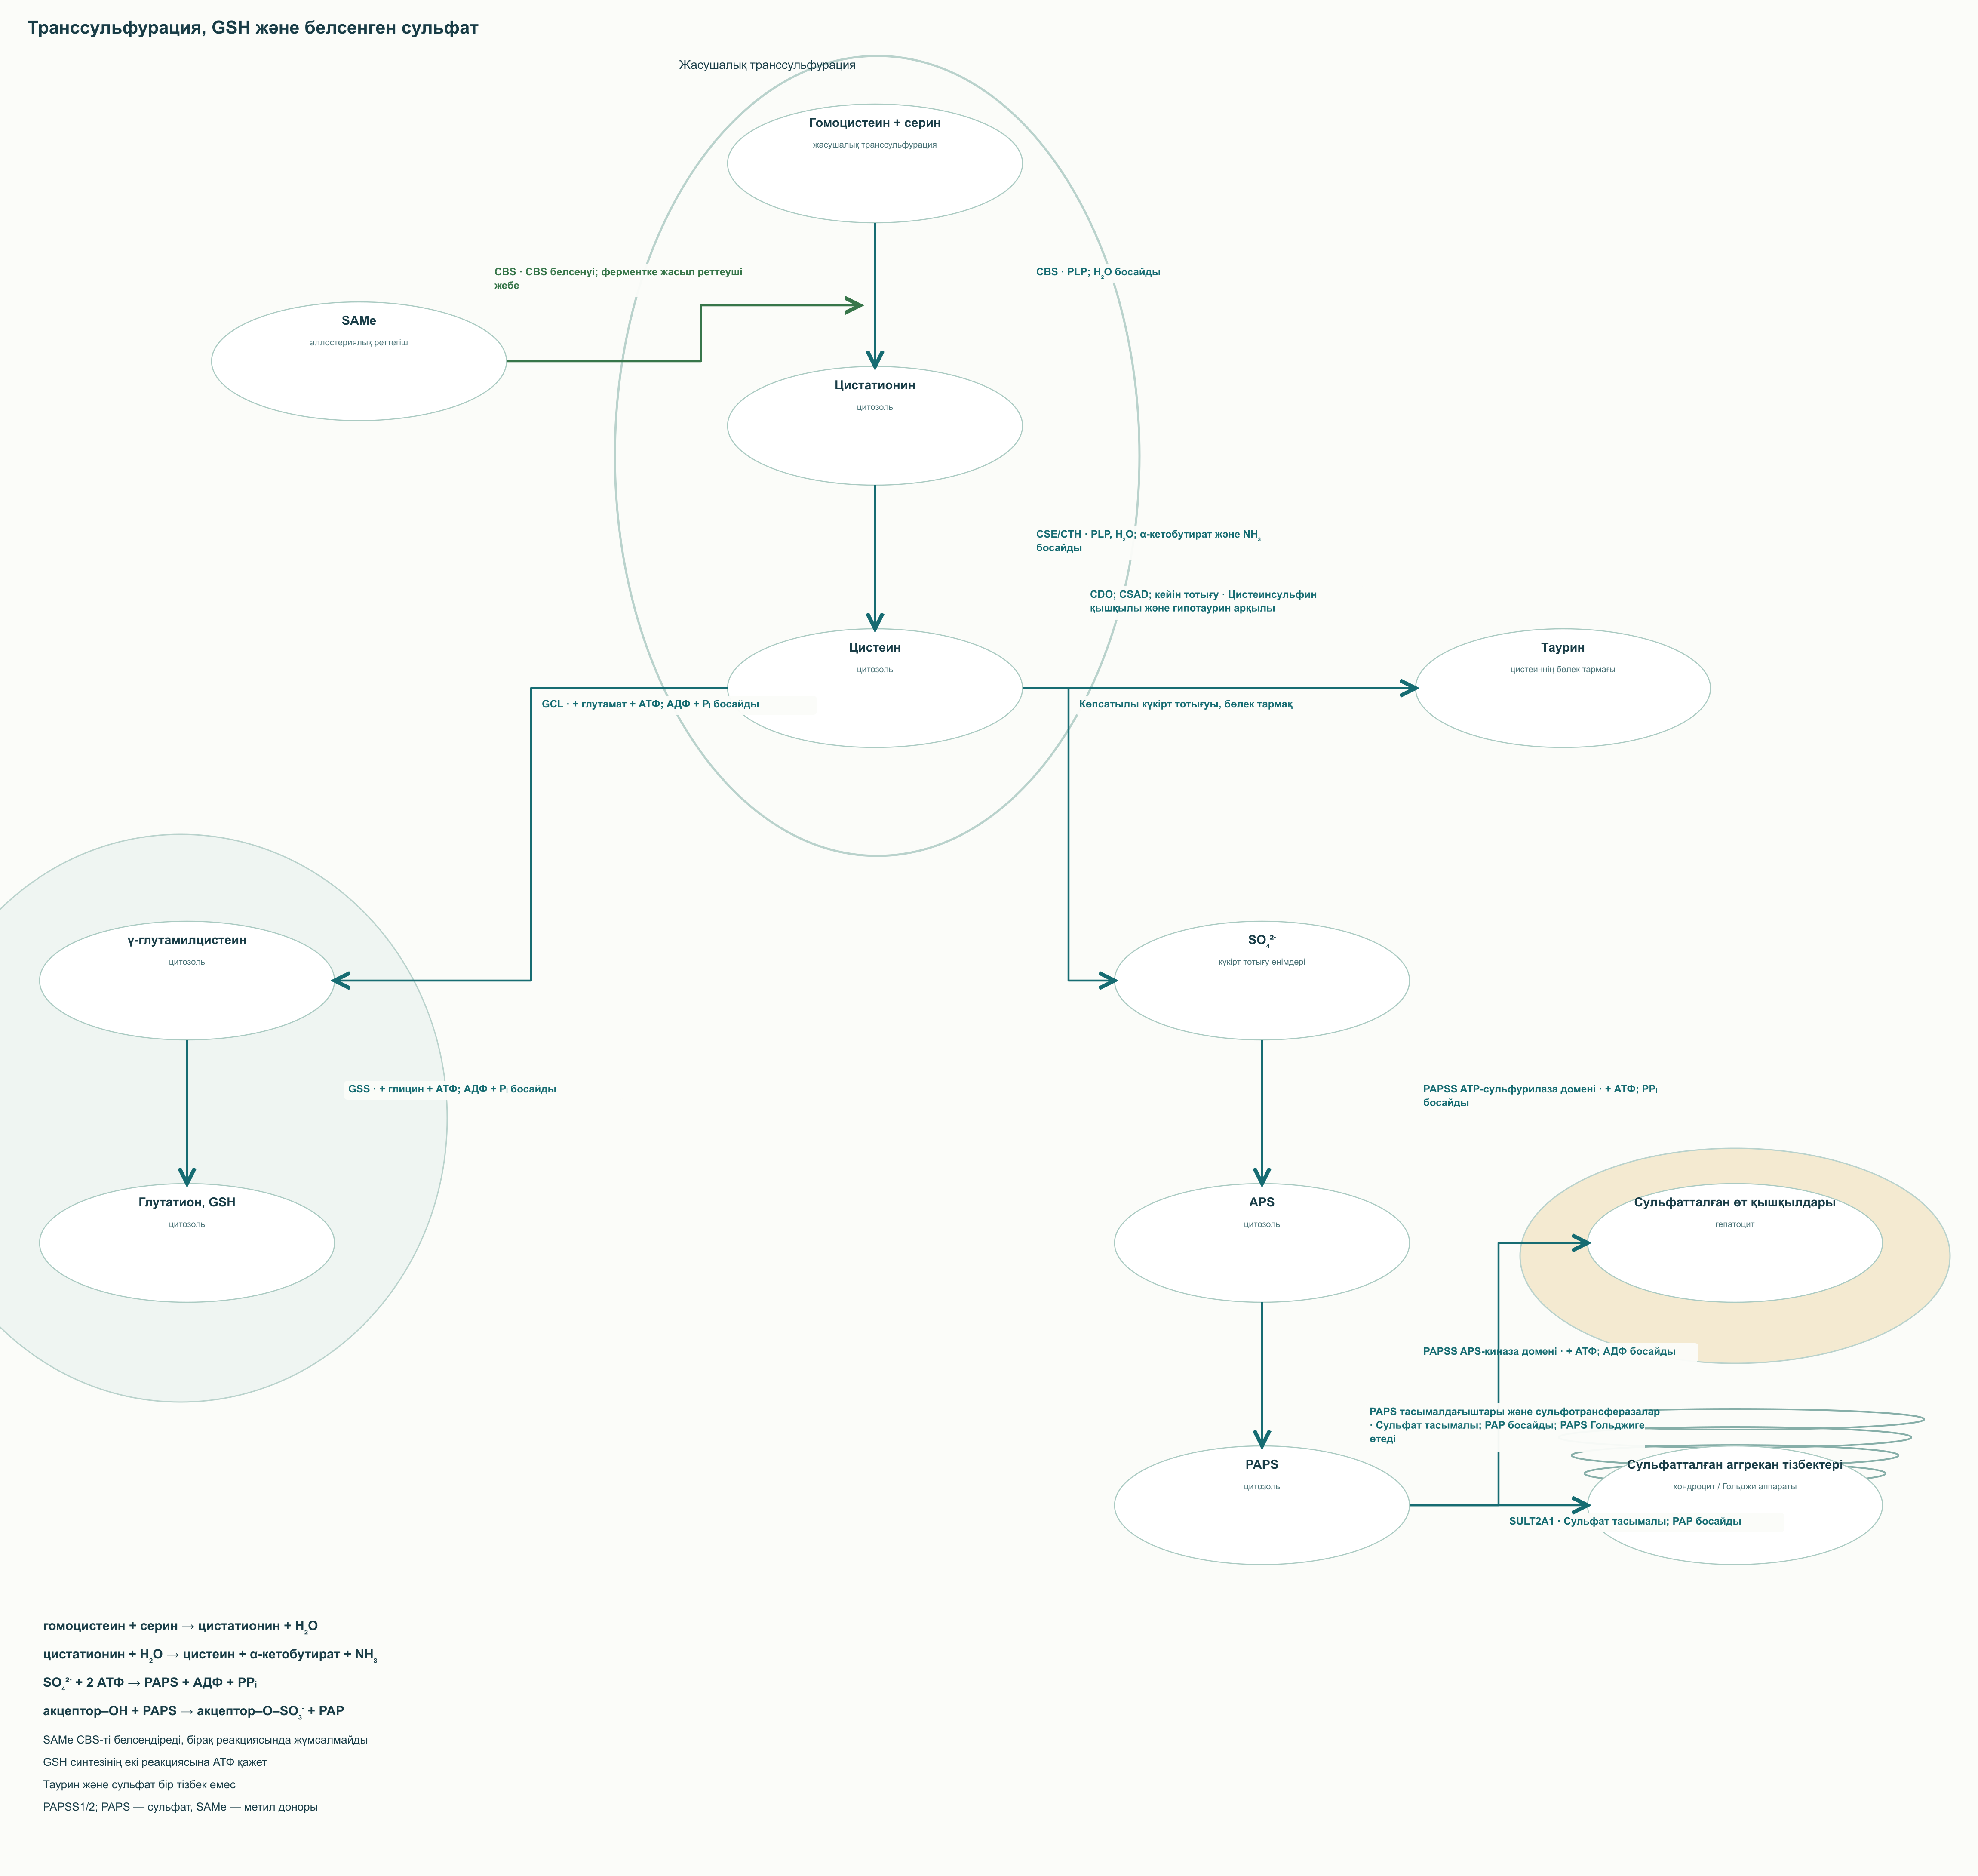
Цистеин глутатион синтезіне АТФ-тәуелді екі реакциямен кіреді. Бұрын γ-GCS аталған GCL глутаматцистеинлигазасы глутамат пен цистеиннен γ-глутамилцистеин түзеді, GSS глутатионсинтетазасы глицин қосады. Қарапайым жиынтық: глутамат + цистеин + глицин + 2 АТФ → GSH + 2 АДФ + 2 Pᵢ. Тотықсызданған глутатион глутатионпероксидазалар мен басқа жүйелерге қатысады; GSSG-ге тотыққанда глутатионредуктаза NADPH көмегімен қалпына келтіреді.
Цистеин қолжетімділігі шектеуі мүмкін, бірақ жалғыз фактор емес. Аминқышқылдардың түсуі, жасушааралық тасымал, GCL экспрессиясы, энергетика мен GSH шығыны маңызды. Мида транссульфурацияның үлесі жасуша түріне қарай өзгереді; бүкіл ОЖЖ-ге бір пайыз берілмейді. SAMe азайса CBS міндетті өшіп, ферроптоз басталады деуге де болмайды. GSH-тың липид пероксидтенуінен қорғауы зерттеу қызығушылығын түсіндіреді, бірақ адеметионинмен клиникалық ферроптоз профилактикасы жеке дәлелденбеген.
Цистеиннен таурин және күкірт тотығу өнімдері, оның ішінде сульфат түзіледі. Бұлар бөлек тармақтар. Сульфат белсенген соң ғана қолданылады: сульфат + АТФ → APS + PPᵢ, кейін APS + АТФ → PAPS + АДФ. Жиынтық реакция:
SO₄²⁻ + 2 АТФ → PAPS + АДФ + PPᵢ.
APS — аденозин-5′-фосфосульфат, PAPS — 3′-фосфоаденозин-5′-фосфосульфат. PAPSS1 және PAPSS2 ATP-сульфурилаза және APS-киназа қызметтерін біріктіреді. PAPS сульфотрансферазаларға сульфат тобын беріп, PAP-қа, 3′-фосфоаденозин-5′-фосфатқа айналады. SAMe де, бос сульфат та бұл белсенуді алмастырмайды.
Бауыр және шеміршек: ортақ алмасу, әртүрлі клиникалық міндеттер
Өт фосфолипидтері және бауырішілік холестаз
MDR3 деп те аталатын ABCB4 гепатоциттің каналикулалық мембранасында PC тасымалын және өтке түсуін қамтамасыз етеді. Фосфолипидтер өт қышқылдары мен холестеринмен аралас мицелла түзеді. Бауырлық PEMT, GSH синтезі және кейбір өт қышқылдарын сульфаттау SAMe-ге гепатоцеллюлярлық алмасу қатысушысы ретінде қызығушылықты түсіндіреді. SULT2A1 PAPS пайдаланып, тиісті субстраттарды сульфаттайды, бұл қасиеттері мен шығарылуын өзгерте алады.
Осы байланыстардан адеметионин әр науқаста мембрананы «сұйылтып», MDR3-ті дәлелді қалпына келтіреді деуге болмайды. Холестаз генетикалық тасымалдағыш ақауларынан, дәрілерден, обструкциядан және басқа себептерден болуы мүмкін. Жүктіліктің бауырішілік холестазы жиі екінші жартыда дамып, гормондық және генетикалық факторлармен байланысты, тек III триместрмен шектелмейді.
46 жүкті әйелдің рандомизацияланған салыстыруында босануға дейін пероральды SAMe 500 мг күніне екі рет және урсодезоксихол қышқылы 300 мг күніне екі рет берілді. Қышыну екі топта азайды, бірақ өт қышқылдары мен кейбір биохимиялық көрсеткіштер урсодезоксихол тобында көбірек төмендеді. Шағын зерттеу SAMe ұрықтың жағымсыз нәтижелерін болдырмайтынын дәлелдемейді. АЛТ не көңіл-күй жақсаруы да акушерлік тәуекел жойылғанына тең емес.
Практикалық мәні — молекулалық алғышарт, биохимиялық жауап және жүктілік нәтижесін ажырату. Өт қышқылдары, клиникалық көрініс және акушерлік бағалау түрлі сұраққа жауап береді. Жүктіліктегі қышыну медициналық бағалауды талап етеді; жүргізуді өз бетінше «цитопротектормен» алмастыру деректерден шықпайды. Өнімге, көрсетілімге және акушерлік шешімге байланыссыз әмбебап басылған инфузия сызбасы орынсыз.
Матриксті сульфаттау және остеоартрит
Шеміршектегі аггреканның теріс зарядты гликозаминогликан тізбектері суды ұстап, қысылуға қарсы тұрады. Сульфотрансферазалар PAPS арқылы сульфатталған тізбектер, соның ішінде хондроитинсульфат түзеді. Күкірт алмасуы осылай матрикспен байланысты, бірақ қалпына келу үшін тірі хондроциттер, ақуыз қаңқасының синтезі, механикалық орта және ыдырау теңгерімі де қажет.
Адеметиониннің жасушалық тәжірибелері хондроцит қасиеттері мен матрикс синтезін зерттеді. Бұл NF-κB, IL-1β, TNF-α, MMP-1/3/13 және ADAMTS-4/5 осінің клиникалық толық тежелуін дәлелдемейді. Молекулалар қабыну мен катаболизмде маңызды, бірақ тікелей зерттеусіз науқастағы SAMe-нің бекітілген нысаналары емес. Ауырсынудың азаюы құрылымдық бұзылудың баяулауын да дәлелдемейді.
Тізе остеоартритіндегі шағын айқаспалы сынақ SAMe 1200 мг/тәулік пен целекоксиб 200 мг/тәулікті салыстырды. Алғашқыда целекоксиб ауырсынуды жылдамырақ азайтты, кейін ұқсас симптомдық нәтижелер байқалды. Шектеулері — шағын үлгі, кезеңдер арасында әсер ауысуы және сирек асқынуды жеткіліксіз бағалау. Жұмыс барлық ҚҚСП-ға әмбебап баламалылықты немесе жүрек-қантамыр қаупінің жоқтығын көрсетпейді.
Түпнұсқа сүйенген шолу 1462 адаммен 14 емес, 656 адаммен төрт сынақты қамтыған. Зерттеу сапасына байланысты қорытынды белгісіз қалды. SAMe шеміршек регенерациясы дәлелденген құрал немесе стандартты емнің автоматты қауіпсіз орны емес. Симптомдық жауапта ауырсыну, функция, жүктемеге төзім және ВАШ пен WOMAC қолданылады, сульфат туралы пайым оларды алмастырмайды.
Депрессия: қайшы сынақтарды қалай түсіндіру керек
SAMe-нің көңіл-күйге ықтимал әсерін метилдену, моноаминдер мен мембранаға байланыстырған. Кейде BDNF промоторының метилденуі модельге кіреді, бірақ метилдену нейротрофин экспрессиясын арттыру деген емес. Ешбір механизм адамдағы антидепрессант әсердің міндетті буыны деп бекітілмеген. Депрессия әркелкі, «SAMe аздығынан» эпизодқа апаратын әмбебап тізбек жоқ.
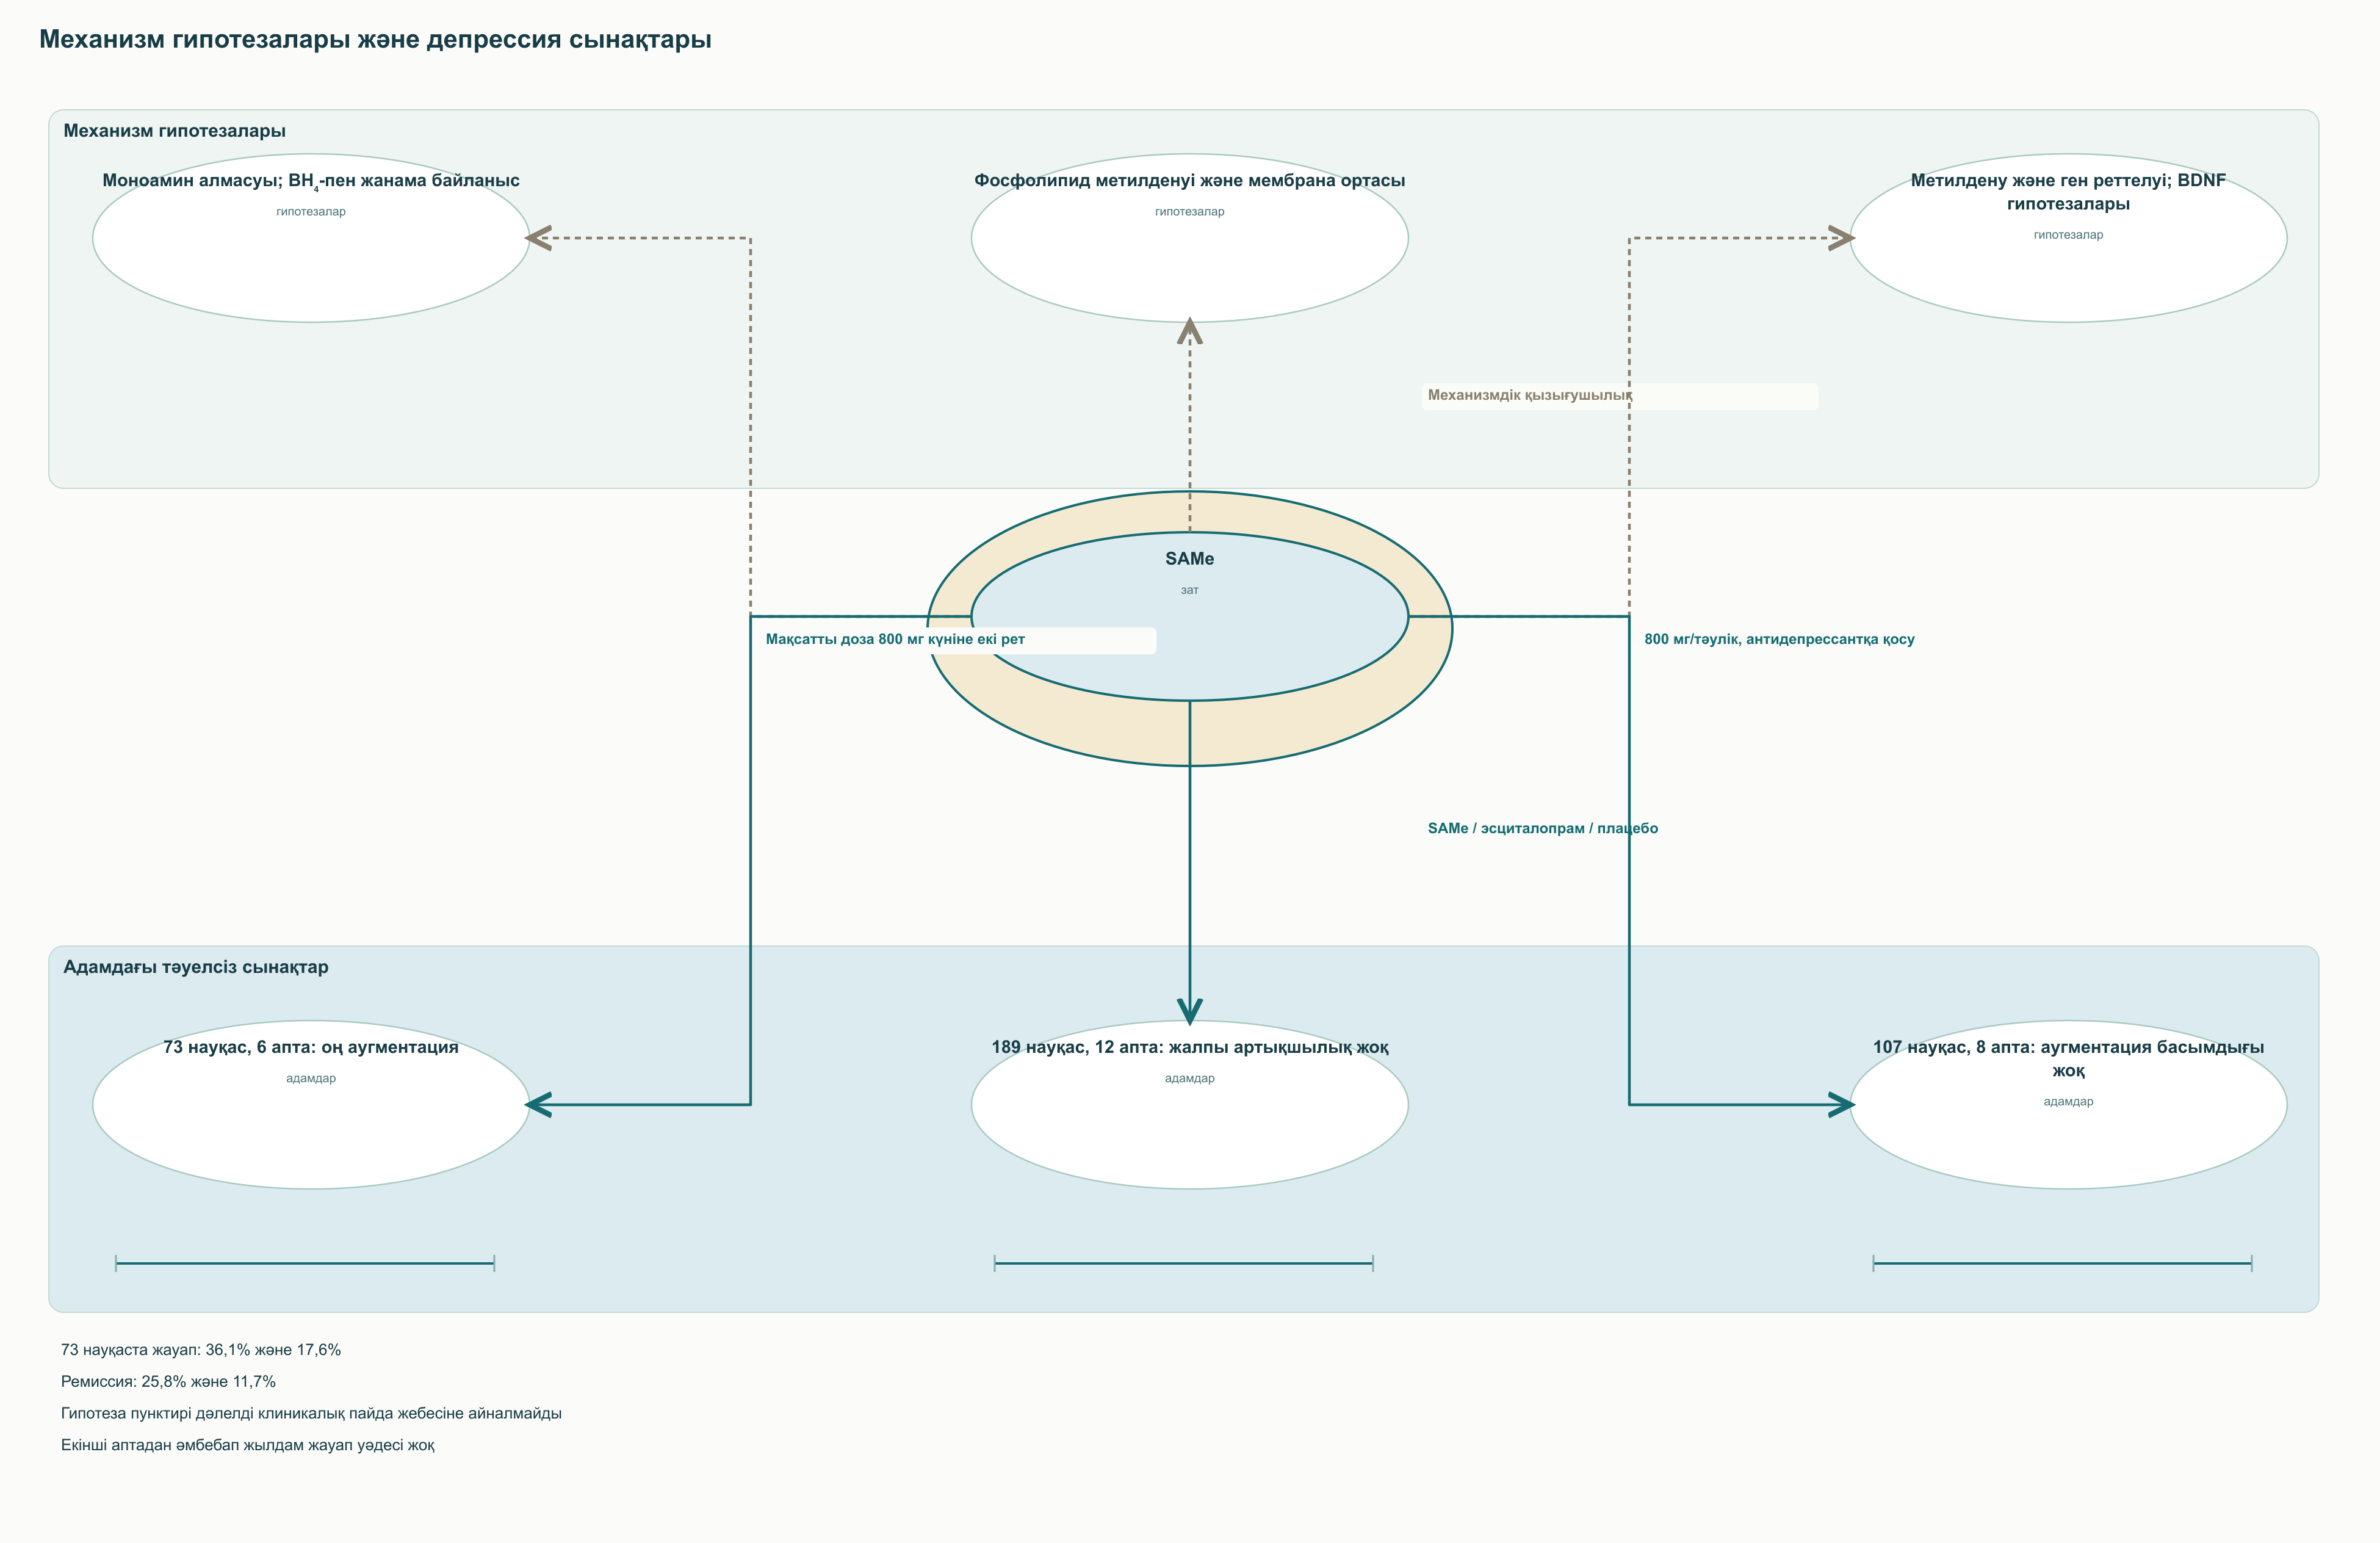
Серотонинді кері қармау тежегішіне SAMe қосудың ең белгілі сынағына жеткіліксіз жауап берген 73 науқас кірді. Алты аптада мақсатты 800 мг күніне екі рет дозасында жауап 36,1%, қосылған плацебода 17,6%; ремиссия 25,8% және 11,7% болды. Бұл шағын аугментация сынағының оң нәтижесі. Оны барлығына таратуға, бірнеше күндегі жылдам әсердің дәлелі деуге немесе өз бетінше дәрі біріктіруге қолдануға болмайды.
Басқа екі орталықты сынақта 189 адам 12 апта SAMe, эсциталопрам немесе плацебо алды. Жалпы үлгіде негізгі нәтиже бойынша еш белсенді нұсқа маңызды басымдық бермеді. Бір орталық талдауы SAMe үшін қолайлырақ болды, бірақ жалпы нәтижені жоққа шығармайды. Екі ем айырмасыз әрі екеуі плацебодан жақсы болмаса, дәлелді клиникалық баламалылық деу қате. Кем емес тиімділік алдын ала шегі бар арнайы дизайнды қажет етеді.
Кейінгі сегіз апталық аугментацияда 107 науқаста SAMe 800 мг/тәулік негізгі шкала бойынша плацебодан артық болмады. Доза мен дизайн өзгешелігі алғашқы тәжірибенің дәл қайталануы деуге кедергі, бірақ тиімділікті біржақты уәде етуге жол бермейді. COMT генотипі мен метаболизм көрсеткіштері арнайы жауапты пайдалы болжай алмады; серотонин синдромына ұқсас жағдай да сипатталған.
| Клиникалық сұрақ | Зерттеулер не көрсетеді | Не белгісіз |
|---|---|---|
| SAMe монотерапиясы | Ерте оң жұмыстар бар; үлкенірек плацебо-бақыланатын салыстырудың негізгі нәтижесі теріс | Қайталануы, оңтайлы түрі мен популяциясы |
| Антидепрессантқа қосу | 73 науқаста оң, 107 науқаста теріс сынақ | Кімге пайдалы және әр комбинацияда қауіп қалай өзгереді |
| Жылдамдық | Жекелеген сынақтарда апталық өзгерістер бағаланды | СКҚСТ-дан әмбебап жылдамдық басымдығы жоқ |
| Көтерімділік | Кейбір сынақта жалпы қолайлы | Сирек реакциялар, ұзақ қауіпсіздік және аффект ауысуы жеке бағаланады |
Психиатр диагноз, ауырлық, суицид қаупі, бұрынғы ем жеткіліктілігі және биполярлық спектрді алдымен анықтайды. SAMe талқыланса, нәтиже мен бағалау мерзімі алдын ала таңдалып, барлық қатар дәрі тіркеледі, ұйқы, мазасыздық пен белсену бақыланады. HAM-D немесе MADRS симптомды қадағалауға көмектеседі, бірақ зертханалық қатынас клиникалық жауап орны емес. Ауыр эпизодта метаболизм гипотезалары қажетті емді кешіктірмеуі керек.
Нейродегенерация: PSEN1, BACE1 және PP2A метилденуі
Ерте ликвор зерттеуінде айқын депрессиясы және деменциясы бар кейбір адамдарда SAMe төмен болған. Бұл алмасу өзгерісін меңзейді, бірақ аурудан бұрын ба, кейін бе — анықтамайды. Әмбебап 70–80% төмендеуді Альцгеймердің әдеттегі диагностикалық белгісі етуге болмайды, плазма жүйке тінін зерттеуді алмастырмайды.
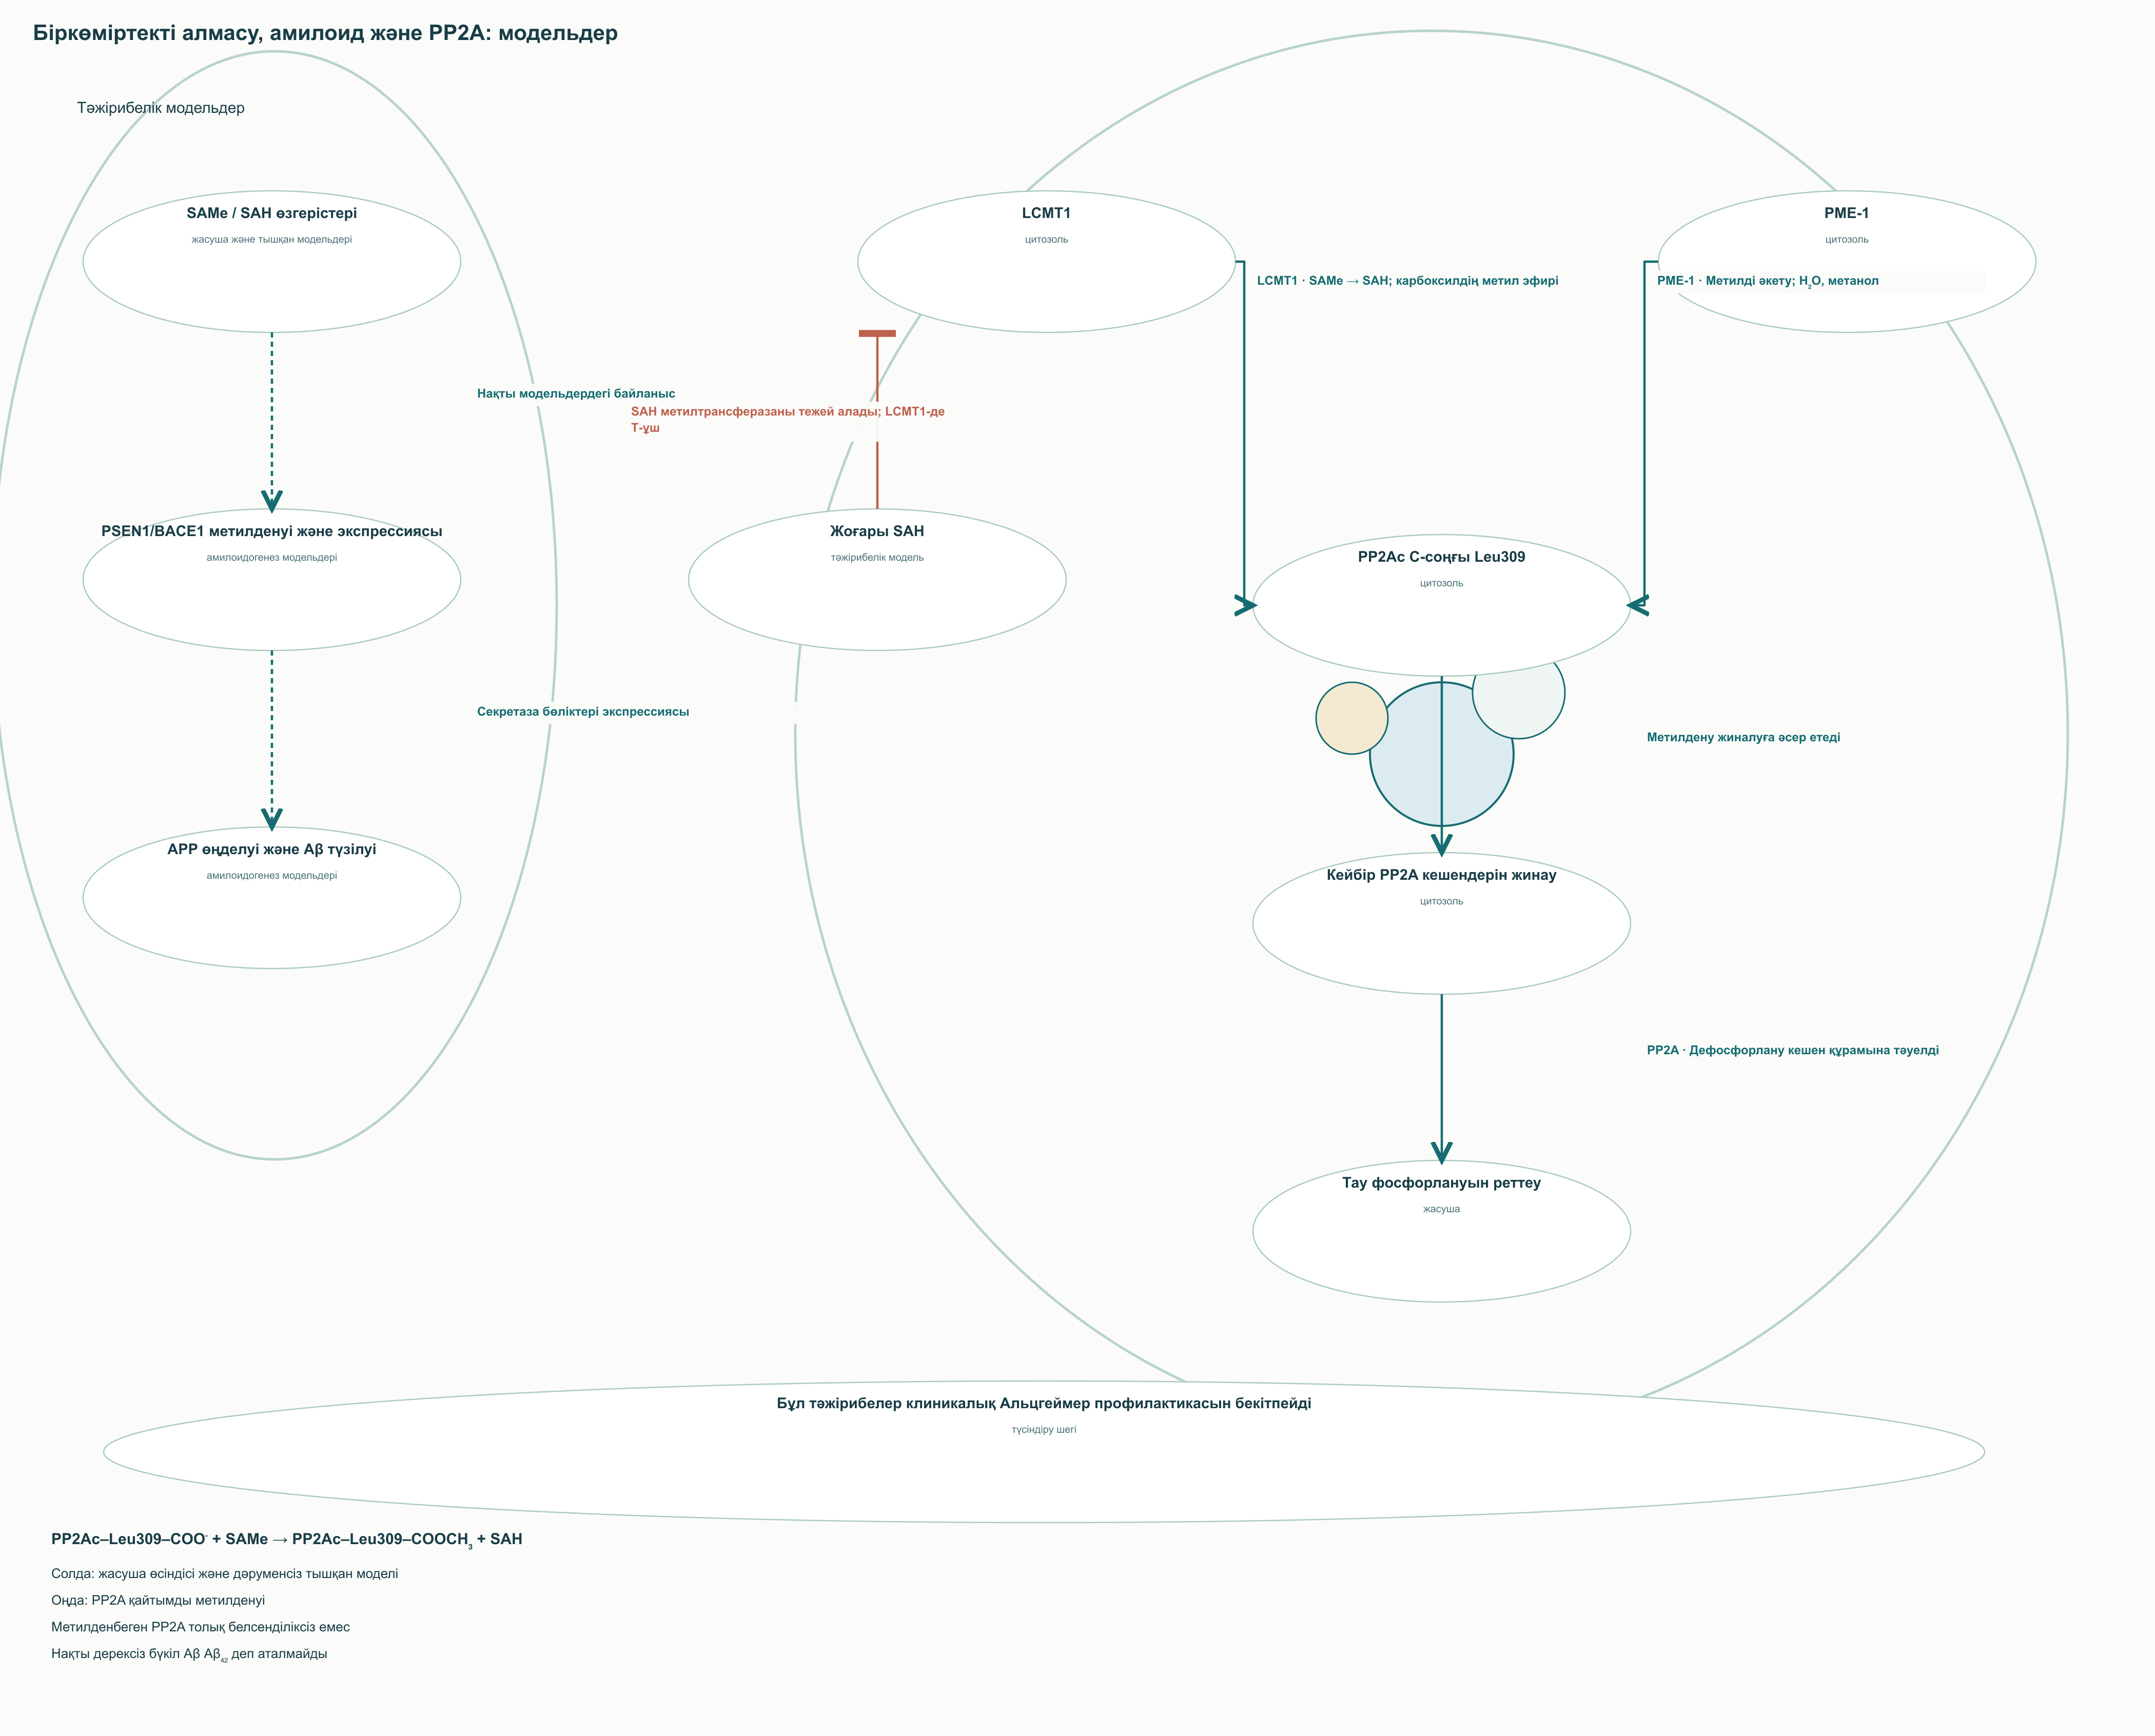
Адам нейробластома жасушаларында SAMe енгізу PSEN1 экспрессиясы мен β-амилоид өндірісін төмендеткен. B дәрумендерінен айырылған тышқандарда SAMe, SAH, PS1 және BACE экспрессиясы, амилоид жиналуы өзгерген. Жүйелер біркөміртекті алмасу мен APP протеолизін зерттейді. Қалыпты адам миындағы барлық PSEN1 және BACE1 промоторы үнемі «үнсіз», дәрі бір нормалы метилденуді қалпына келтіреді деген дәлел емес. Пресенилин-1 γ-секретаза кешенінің бір бөлігі; оның экспрессиясы бүкіл амилоидогенезді сипаттамайды.
Екінші тармақ PP2A протеинфосфатазасына қатысты. LCMT1 SAMe метилін каталитикалық субъбірліктің C-соңғы Leu309 карбоксиліне беріп, метил эфирі мен SAH түзеді. PME-1 метилді алып тастай алады. Өзгеріс реттеуші субъбірлікті кейбір кешендердің жиналуы мен субстрат таңдауына, соның ішінде тау фосфорлануын реттеуге әсер етеді. Leu309 — PP2Ac-тің белгілі құрылымына сәйкес орын, кездейсоқ сан емес.
Нейробластомалар мен тышқандарда SAH жиналуы PP2A метилденуі және тау мен APP фосфорлануымен байланысты болған. Метилденбеген PP2A толық белсенділіксіз емес: метилдену негізінен кешен құрамын және қасиетін өзгертеді. Сондықтан «SAMe тапшылығы — бүкіл PP2A өшуі — міндетті нейрофибриллярлық түйін» тым қатаң.
Клиницист үшін бұл зерттеу нысаналарын түсіндіреді, деменция профилактикасы хаттамасы емес. Когнитивтік шағымда функция мен күнделікті дербестік, дәрілер, тамыр факторлары, ұйқы және түзетілетін себептер бағаланады. MoCA, MMSE тиісті контексте; балл өзгерісі амилоид не тау әсерін дәлелдемейді. SAMe профилактикалық курстары мен бәріне гомоцистеинді 7–8 мкмоль/л-ден төмендету бұл жұмыстармен негізделмейді.
Дәрілік түр және фармакокинетика
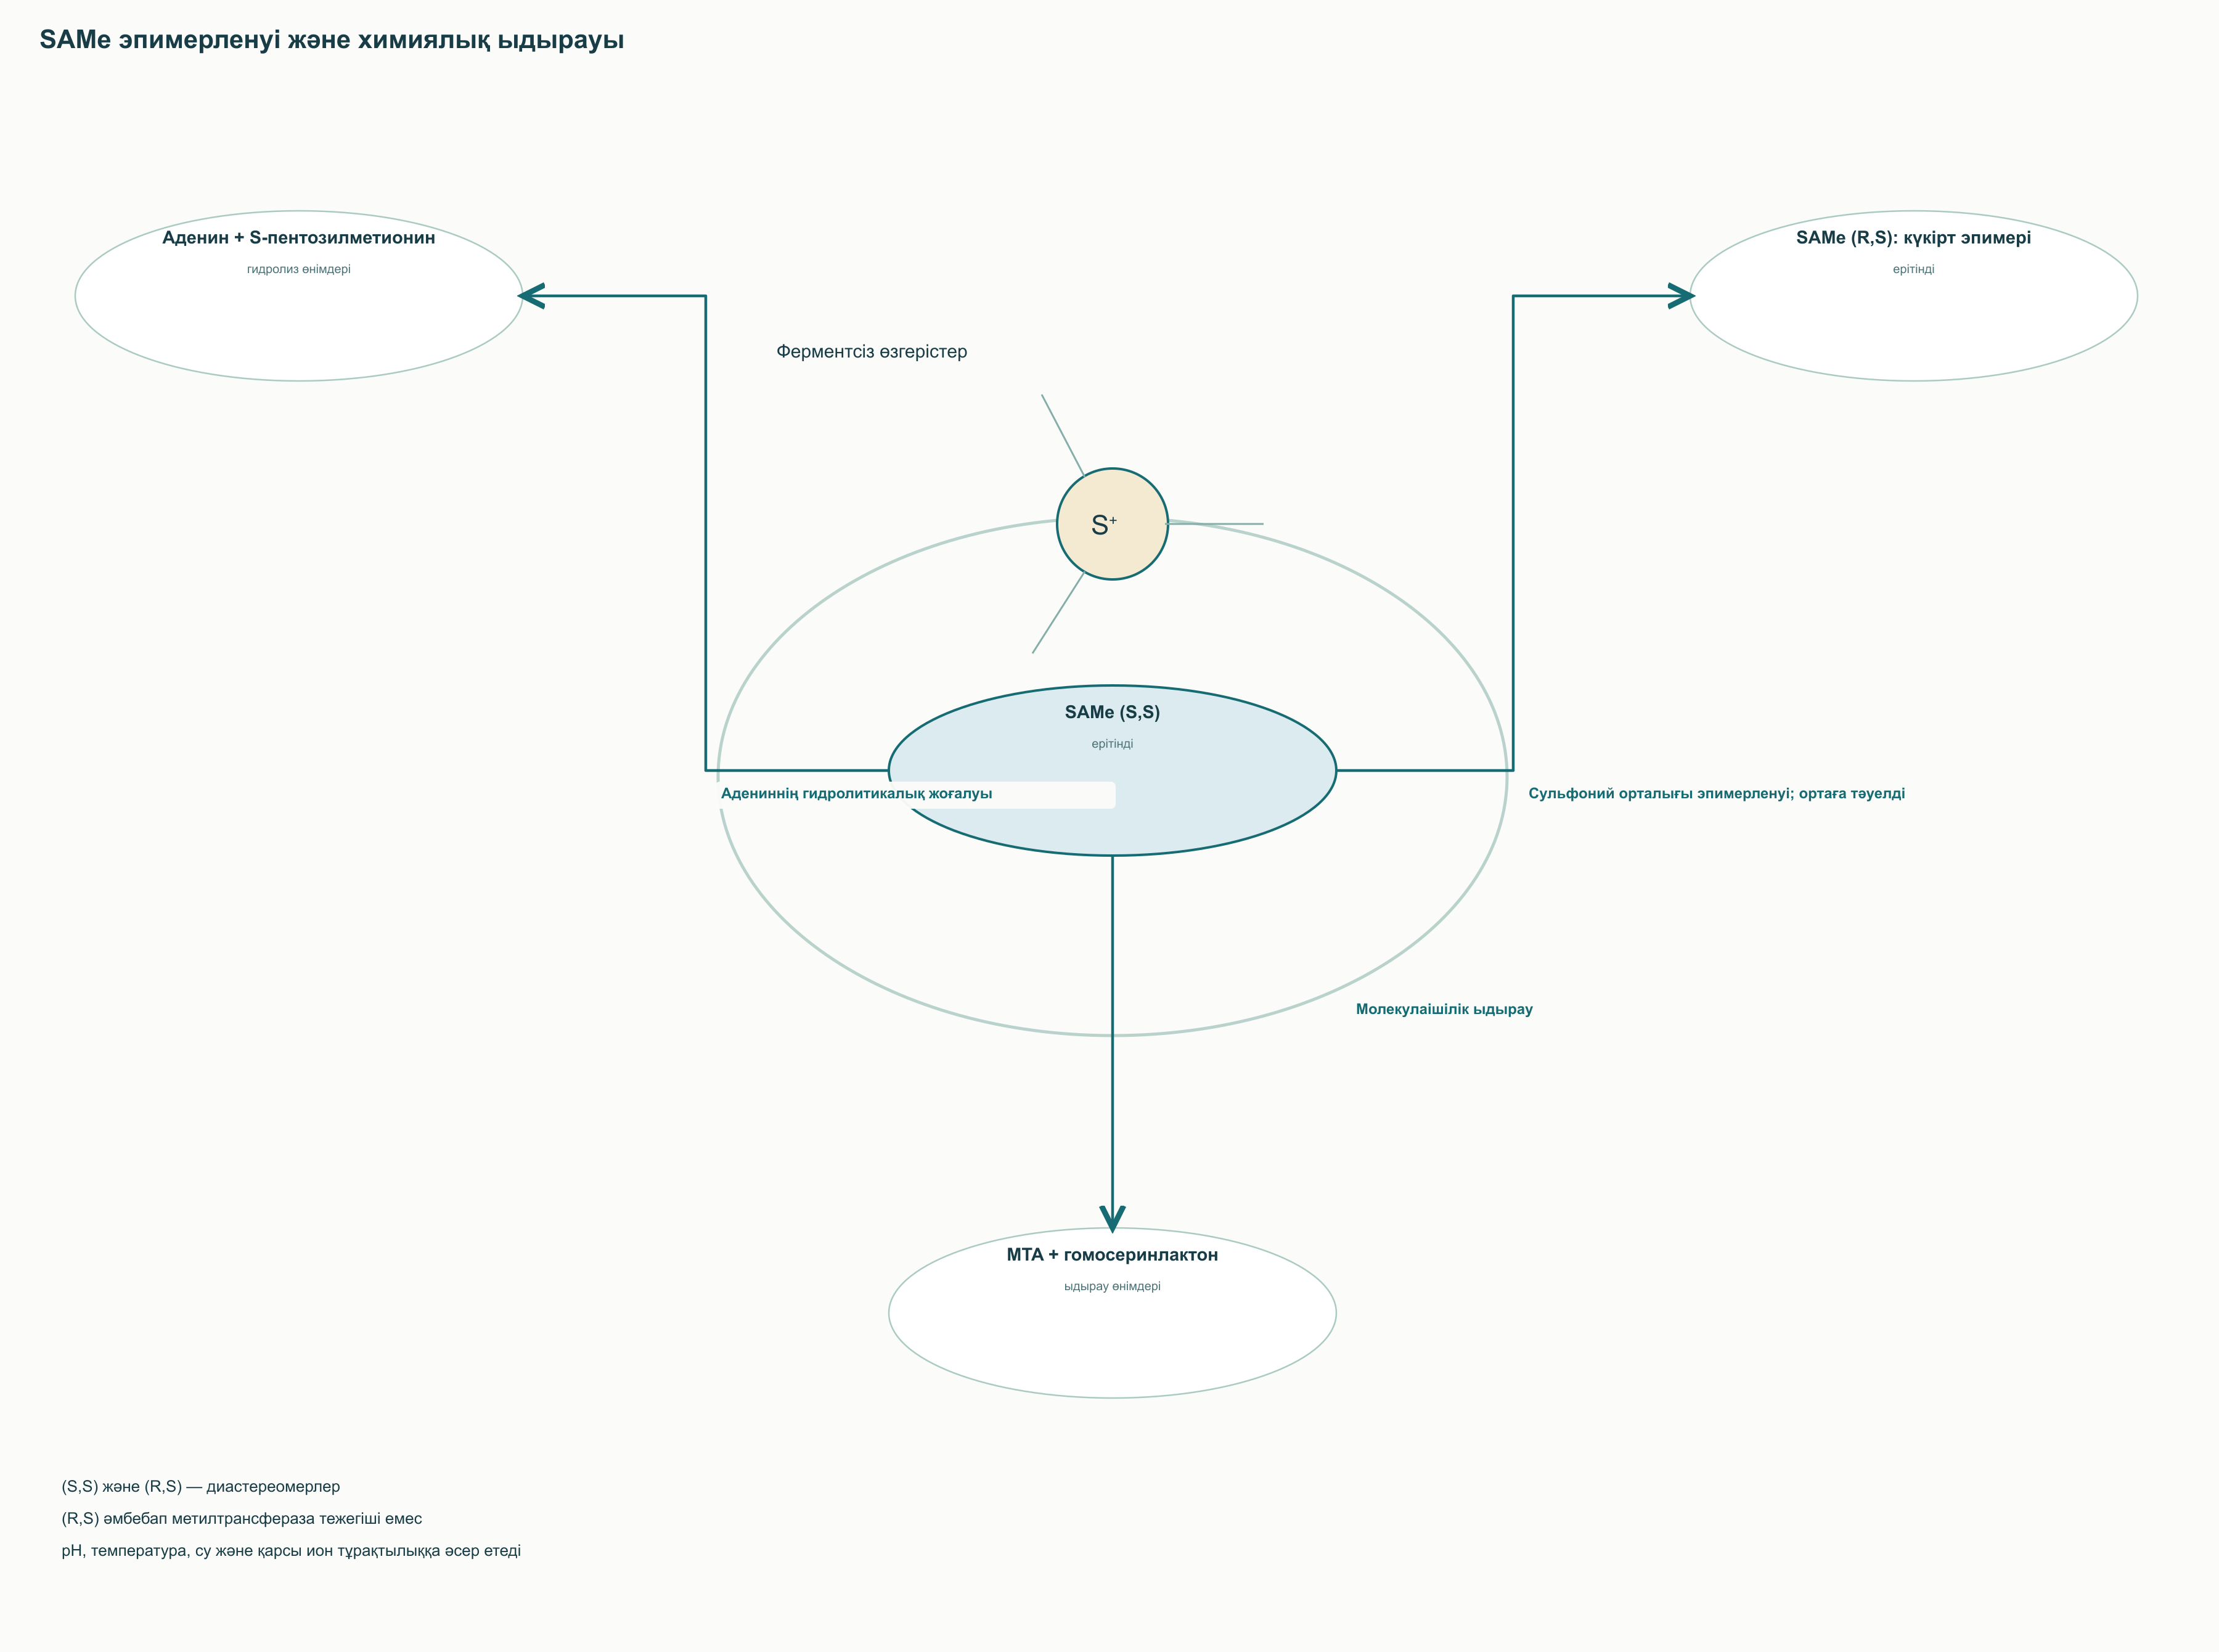
SAMe-де екі стереогендік орталық бар: күкірт және метиониннің α-көміртегі. Қалыпты метилтрансферазалар үшін физиологиялық маңызды конфигурация (S,S). Күкірт эпимерленсе, айнадағы энантиомер емес, (R,S)-диастереомер пайда болады. Ол кәдімгі метилденуге азырақ жарамды, бірақ барлық трансметилазаны тікелей тежейтін әмбебап зат деп жариялауға болмайды.
Эпимерленуден бөлек, 5′-метилтиоаденозин, MTA, және гомосеринлактонға ыдырау, сондай-ақ адениннің гидролитикалық жоғалуынан S-пентозилметионин түзілуі мүмкін. Жылдамдығы pH, температура мен ортаға тәуелді. Бұл сақтау және құрам бақылауын түсіндіреді, кез келген асқазан сөлімен жанасқанда толық бұзылады деген емес.
Препараттарда тұрақтандырылған тұздар, оның ішінде 1,4-бутандисульфонат және тозилат/сульфат түрлері қолданылады. Атауы барлық (S,S)-изомер жарамдылық соңына дейін сақталады деп кепілдік бермейді. Тұз массасын белсенді адеметионин мөлшерінен ажыратып, қаптама, ылғал және өнім деректерін ескеру керек. Екі өнім дозасын бүкіл тұз массасымен салыстыру қате.
Ішекте еритін түрлер босау орны мен уақытын өзгертеді. Нұсқаулыққа қайшы болса, қабықты ұсақтамайды, шайнамайды. Бірақ барлық ауыз арқылы технология pH 6 шегі бар бірдей қабыққа міндетті емес. Тамақпен байланысы мен сақтау шарты да нақты түрге, жалпы молекулаға емес, қатысты.
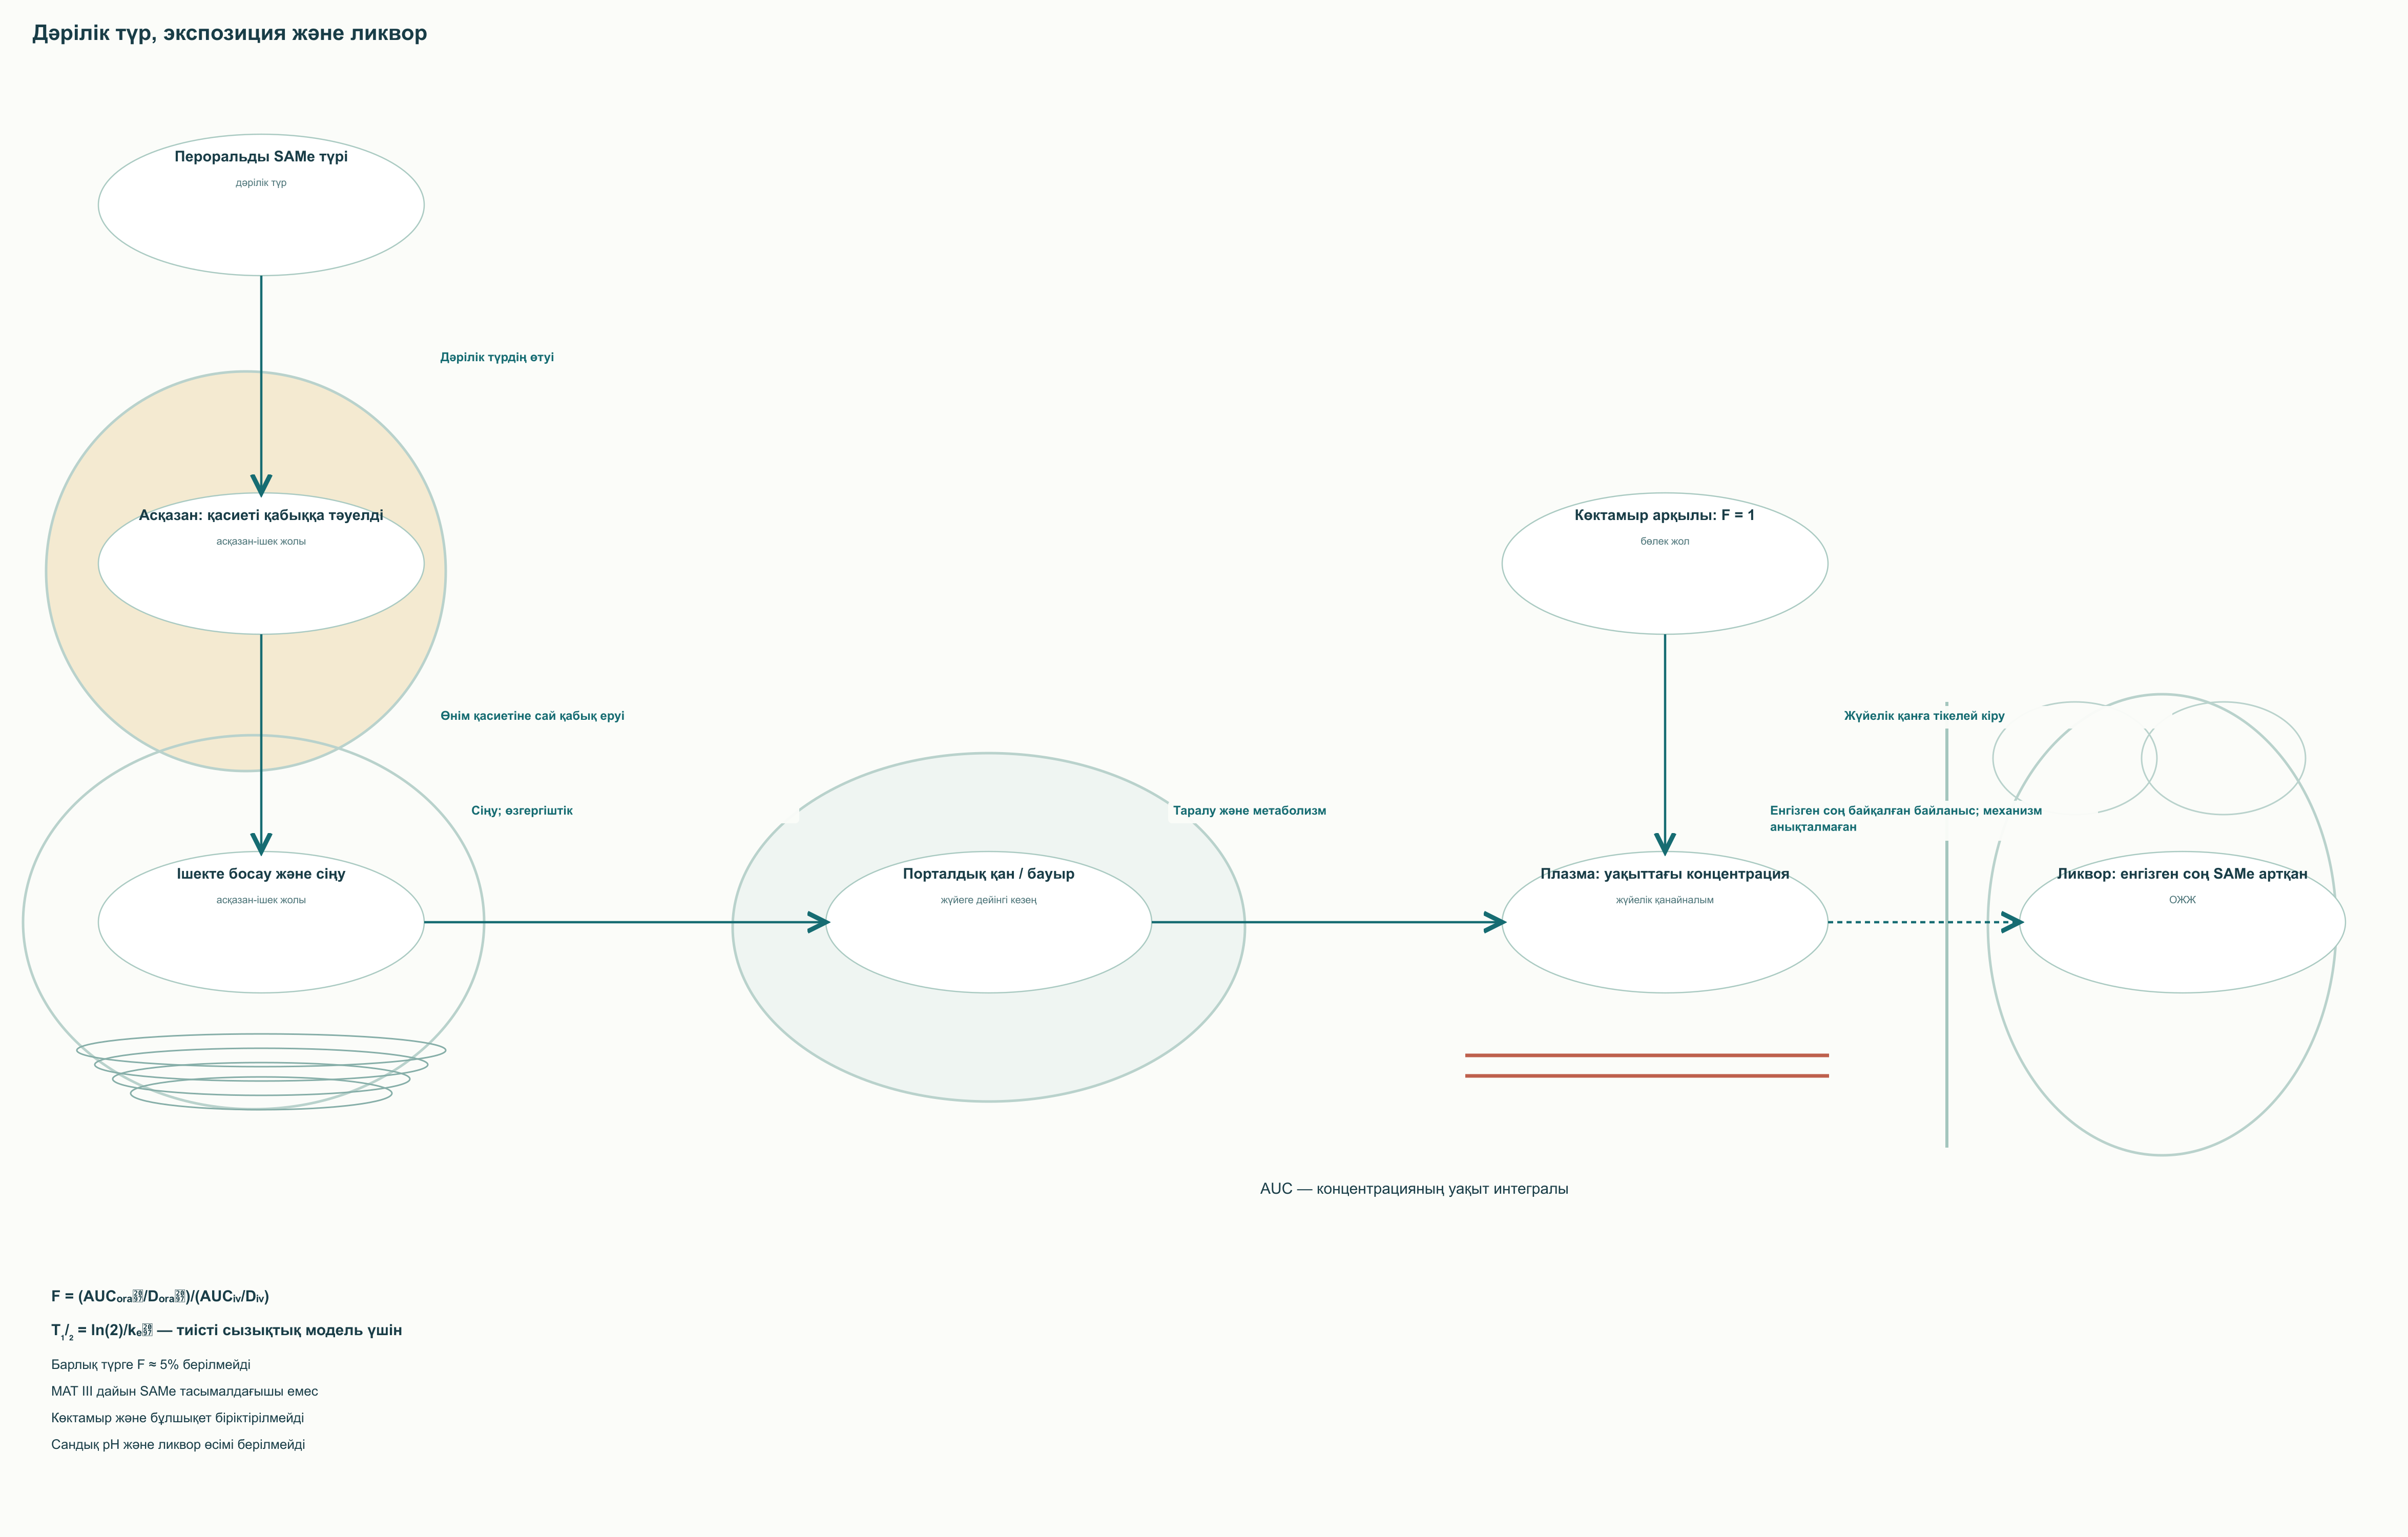
| Көрсеткіш | Не айтуға болады | Практикада қолдану |
|---|---|---|
| Биожетімділік F | Көктамырда анықтама бойынша F = 1; пероральды экспозиция төмен әрі түрге тәуелді | Көктамыр және бұлшықет жолдарын бір диапазонға қоспау |
| Tₘₐₓ | Шың уақыты енгізу, қабық және сіңуге тәуелді | Шағын зерттеу санын барлық өнімге көшірмеу |
| T₁/₂ | Белгілі кезеңдегі концентрация кемуін сипаттайды | Клиникалық әсер ұзақтығы емес |
| Плазма және ликвор | Енгізген соң екеуінде SAMe артқан | Ликвордың артуы нақты тасымалды не тиімділікті бекітпейді |
| Қайталама дозалар | Жеке тұздар нақты режим қасиетін көрсетеді | Түр, популяция және қатар ем дерегі қажет |
Абсолюттік биожетімділік формуласы: F = (AUCₒᵣₐₗ/Dₒᵣₐₗ)/(AUCᵢᵥ/Dᵢᵥ). AUC — концентрация–уақыт қисығы астындағы аудан, D — енгізілген доза; жағдайлар үйлесіп, эндогендік фон ескеріледі. Сызықтық элиминациясы бар біркомпартментті модельде T₁/₂ = ln(2)/kₑₗ, kₑₗ — элиминация константасы. Формулалар ұғымды түсіндіреді, әмбебап F шамамен 5% немесе T₁/₂ бір жарым сағат бекітпейді. Ликвор өзгерісі де бәріне 40–80% өсім уәде етпейді.
Қауіпсіздік және маманның тағайындаумен жұмысы
Эндогендік шығу тегі енгізгенде жағымсыз әсер болмайтынын білдірмейді. Асқазан-ішек шағымы, ұйқысыздық, мазасыздық пен қозу болуы мүмкін. Аффект ауысуы ерекше назарда: гипомания не мания ерте клиникалық жұмыстарда-ақ сипатталған. Адеметионинді талқыламас бұрын көтеріңкі көңіл-күй, ұйқы қажеттілігінің азаюы, әдеттен тыс белсенділік, отбасылық анамнез және антидепрессант реакциялары сұралады.
Нормотимик SAMe-ні автоматты қауіпсіз етпейді, биполярлық депрессияның дәлелді еміне айналдырмайды. Спектр күдігінде шешім психиатрға тиесілі; көпшілік мақаладағы монотерапия сызбасы жарамайды. Қозу, ұйқысыздық пен мінез өзгерісі күшейсе, доза өсіру емес, клиникалық қайта бағалау қажет.
Серотонинергиялық қосылыстар дәрілік салыстыруды талап етеді. Сынақтарда SAMe кері қармау тежегіштеріне қосылған, сондықтан әр комбинация міндетті уытты деу қате. Бірақ бұл МАО тежегіштерімен, бірнеше антидепрессантпен, 5-HTP, трамадол, декстрометорфан не шайқураймен кез келген қоспаның қауіпсіздігін дәлелдемейді. Клонус, гиперрефлексия, тремор, қозу және гипертермия шұғыл медициналық бағалауды талап етеді; «табиғилық» қаупін шешпейді.
Циклде гомоцистеин түзілуі SAMe-ден кейін қанда міндетті артатыны емес. Дені сау еріктілердің плацебо-бақыланатын зерттеуі және психиатриялық сынақтың бір бөлігіне биохимиялық талдау мұндай міндетті өсімді таппады. Бұл барлық жағдайда кепіл емес, бірақ бәріне алдын ала жоғары B₁₂, фолат, B₆ және бетаин беруге негізді жояды.
Кофактор расталған тапшылықта немесе бөлек көрсетілімде қажет. B₁₂ күдігінде тек фолатпен шектелмей, себеп анықталады. Созылмалы B₆ артығы шеткері жүйкені зақымдайды, сондықтан тек болжамды «метилденуді қолдау» үшін 20–50 мг/тәулік қосуға болмайды. Бетаин негізінен бауыр мен бүйректегі BHMT арқылы жұмыс істейді; миға SAH-тан әмбебап қорғаныс емес.
| Жағдай | Маман нені анықтайды | Маңызды нәтиже |
|---|---|---|
| Депрессиядағы толық емес жауап | Диагноз, биполярлық спектр, ем жеткіліктілігі, әрекеттесу, науқас қалауы | Симптом, функция, қауіпсіздік; сұхбатқа қосымша HAM-D/MADRS |
| Когнитивтік шағым | Түзетілетін себеп, ұйқы, тамақ, дәрі, неврология | Нақты функция мен динамика, амилоид профилактикасын уәде етпей |
| Жүктілік холестазы | Қышыну себебі, өт қышқылы, акушерлік қауіп, жоспар | Ана симптомы және жүктілік нәтижесі; АЛТ қауіп бағасын алмастырмайды |
| Остеоартрит | Диагноз, жүктеме, ауырсыну, қозғалыс, қатар ауру | Ауырсыну мен функция; регенерация дәлелі жоқ |
| Дәрумен тапшылығы күдігі | Тамақтану, мальабсорбция, белгі, қажетті талдау | Анықталған бұзылысты түзету, зерттеу индексін ғана емдемеу |
Бұл реттілік түрлі ауруға әмбебап «индукциялық» және «қолдаушы» хаттаманы алмастырады. Зерттеу дозасы қолданылуды бағалайды, бірақ міндетті инъекциялық бастау, бірнеше айлық курс не бекітілген еріткіш көлемін негіздемейді. Тіркелген көрсетілімде түр, доза мен енгізу нұсқаулық және клиникалық шешіммен анықталады. Белсендірсе, уақыт пен тоқтату талқыланады, бәріне соңғы қабылдау 14:00-ге дейін деп бекітілмейді.
SAMe метилдерді, мембрана липидтерін, моноаминдердің жеке реакцияларын және күкірт тасымалын байланыстыратын маңызды метаболизм қатысушысы болып қалады. Маман үшін құндылығы механизм мен зерттеулерді дәл түсіндіруде. Бұл бұзылыстың себебін табуға, клиникалық сұрақ қоюға көмектеседі, бірақ тиімділік дәлелін әдемі биохимиялық сызбамен алмастырмайды.
Жиі қойылатын сұрақтар
SAMe/SAH арқылы депрессия немесе «метилдену блокадасы» анықтала ма?
Жоқ. Бұл орта мен әдіске тәуелді зерттеу көрсеткіші; әмбебап диагностикалық шектер жоқ. Клиникалық күй мен нақты алмасу бұзылыстарының себептері бағаланады.
SAMe дофамин мен серотонинді тікелей көтере ме?
SAMe PNMT-, COMT- және ASMT-тәуелді реакцияларға қатысады, бірақ L-ДОФА-дан дофамин немесе 5-HTP-ден серотонин түзу субстраты емес. Соңғы сигнал әсерін бір ферментпен болжауға болмайды.
Адеметионинмен Альцгеймер профилактикасы дәлелденген бе?
Жасуша және тышқан модельдері біркөміртекті алмасуды амилоид және PP2A/таумен байланыстырады. Олар клиникалық профилактикалық SAMe курсын негіздемейді.
SAMe қабылдайтындардың бәріне B дәрумендері мен бетаин керек пе?
Жоқ. Кофактор тапшылықта немесе бөлек көрсетілімде беріледі. Метионин циклі дәріден кейін гомоцистеин міндетті артатынын дәлелдемейді, B₆ артығы зиян келтіруі мүмкін.
SAMe-ні антидепрессантқа өзім қоса аламын ба?
Зерттеу комбинациялары өз бетінше қолдану нұсқаулығы емес. Дәрілерді салыстыру, биполярлық спектрді бағалау және белсену мен серотонинергиялық симптомды бақылау қажет.
Дереккөздер
- Cantoni GL. The Nature of the Active Methyl Donor Formed Enzymatically from L-Methionine and Adenosinetriphosphate. J Am Chem Soc. 1952;74:2942–2943.
- Hirata F, Axelrod J. Phospholipid methylation and biological signal transmission. Science. 1980;209:1082–1090.
- Lu SC, Mato JM. S-adenosylmethionine in liver health, injury, and cancer. Physiol Rev. 2012;92:1515–1542.
- Bottiglieri T. S-Adenosyl-L-methionine (SAMe): from the bench to the bedside—molecular basis of a pleiotrophic molecule. Am J Clin Nutr. 2002;76:1151S–1157S.
- Papakostas GI, Mischoulon D, Shyu I, Alpert JE, Fava M. S-adenosyl methionine (SAMe) augmentation of serotonin reuptake inhibitors for antidepressant nonresponders with major depressive disorder: a double-blind, randomized clinical trial. Am J Psychiatry. 2010;167:942–948.
- Sarris J, Papakostas GI, Vitolo O, Fava M, Mischoulon D. S-adenosyl methionine (SAMe) versus escitalopram and placebo in major depression RCT: efficacy and effects of histamine and carnitine as moderators of response. J Affect Disord. 2014;164:76–81.
- Sharma A, Gerbarg PL, Bottiglieri T, et al. S-Adenosylmethionine (SAMe) for Neuropsychiatric Disorders: A Clinician-Oriented Review of Research. J Clin Psychiatry. 2017;78:e656–e667.
- Fuso A et al. B-vitamin deprivation induces hyperhomocysteinemia and brain S-adenosylhomocysteine, depletes brain S-adenosylmethionine, and enhances PS1 and BACE expression and amyloid-beta deposition in mice. Mol Cell Neurosci. 2008;37:731–746.
- Scarpa S, Fuso A, D’Anselmi F, Cavallaro RA. Presenilin 1 gene silencing by S-adenosylmethionine: a treatment for Alzheimer disease? FEBS Lett. 2003;541:145–148.
- Vafai SB, Stock JB. Protein phosphatase 2A methylation: a link between elevated plasma homocysteine and Alzheimer’s Disease. FEBS Lett. 2002;518.
- Vance DE. Role of phosphatidylcholine biosynthesis in the regulation of lipoprotein homeostasis. Curr Opin Lipidol. 2008;19:229–234.
- Rutjes AWS, Nüesch E, Reichenbach S, Jüni P. S-Adenosylmethionine for osteoarthritis of the knee or hip. Cochrane Database Syst Rev. 2009;CD007321.
- Najm WI, Reinsch S, Hoehler F, Tobis JS, Harvey PW. S-adenosyl methionine (SAMe) versus celecoxib for the treatment of osteoarthritis symptoms: a double-blind cross-over trial. BMC Musculoskelet Disord. 2004;5:6.
- Roncaglia N, Locatelli A, Arreghini A, Assi F, Cameroni I, Pezzullo JC, Ghidini A. A randomised controlled trial of ursodeoxycholic acid and S-adenosyl-l-methionine in the treatment of gestational cholestasis. BJOG. 2004;111:17–21.
- Anstee QM, Day CP. S-adenosylmethionine (SAMe) therapy in liver disease: a review of current evidence and clinical utility. J Hepatol. 2012;57:1097–1109.
- Carney MWP, Chary TKN, Bottiglieri T, Reynolds EH. The switch mechanism and the bipolar/unipolar dichotomy. Br J Psychiatry. 1989;154:48–51.
- De Berardis D et al. A comprehensive review on the efficacy of S-Adenosyl-L-methionine in Major Depressive Disorder. CNS & Neurological Disorders - Drug Targets. 2016;15(1):35–44.
- Mischoulon D, Price LH, Carpenter LL, et al. A double-blind, randomized, placebo-controlled clinical trial of S-adenosyl-L-methionine (SAMe) versus escitalopram in major depressive disorder. J Clin Psychiatry. 2014;75:370–376.
- Sarris J, Byrne GJ, Bousman C, et al. Adjunctive S-adenosylmethionine (SAMe) in treating non-remittent major depressive disorder: An 8-week double-blind, randomized, controlled trial. Eur Neuropsychopharmacol. 2018;28:1126–1136.
- Mechanism and Inhibition of Human Methionine Adenosyltransferase 2A. Первичное кинетическое исследование человеческой MAT2A. 2021.
- Human Mat2A Uses an Ordered Kinetic Mechanism and Is Stabilized but Not Regulated by Mat2B. 2021.
- McCorvie TJ, Kopec J, Hyung SJ, et al. Inter-domain communication of human cystathionine β-synthase: structural basis of S-adenosyl-L-methionine activation. J Biol Chem. 2014.
- Mechanism of bovine liver S-adenosylhomocysteine hydrolase. Steady-state and pre-steady-state kinetic analysis. J Biol Chem. Первичное ферментативное исследование.
- Hirata F, Axelrod J. Enzymatic methylation of phosphatidylethanolamine increases erythrocyte membrane fluidity. Nature. 1978;275:219–220.
- Specificity and rate of human and mouse liver and plasma phosphatidylcholine synthesis analyzed in vivo. Первичное исследование стабильных изотопов.
- Docosahexaenoic acid in plasma phosphatidylcholine may be a potential marker for in vivo phosphatidylethanolamine N-methyltransferase activity in humans. 2011.
- Chen J, Lipska BK, Halim N, et al. Functional analysis of genetic variation in catechol-O-methyltransferase (COMT): effects on mRNA, protein, and enzyme activity in postmortem human brain. Am J Hum Genet. 2004;75:807–821.
- Crystal structure and functional mapping of human ASMT, the last enzyme of the melatonin synthesis pathway. J Pineal Res. 2012.
- Catecholamines and Serotonin Are Differently Regulated by Tetrahydrobiopterin: A Study from 6-Pyruvoyltetrahydropterin Synthase Knockout Mice. J Biol Chem.
- The Crystal Structure of Human PAPS Synthetase 1 Reveals Asymmetry in Substrate Binding. J Mol Biol. 2005;347:623–635.
- Protein phosphatase 2A methyltransferase links homocysteine metabolism with tau and amyloid precursor protein regulation. J Neurosci. 2007.
- Chromatographic analysis of the chiral and covalent instability of S-adenosyl-L-methionine. 1986.
- Stability-indicating proton nuclear magnetic resonance spectroscopic method for determination of S-adenosyl-L-methionine in tablets. 1995.
- Bottiglieri T, Godfrey P, Flynn T, Carney MW, Toone BK, Reynolds EH. Cerebrospinal fluid S-adenosylmethionine in depression and dementia: effects of treatment with parenteral and oral S-adenosylmethionine. J Neurol Neurosurg Psychiatry. 1990;53:1096–1098.
- Pharmacokinetic properties of S-adenosylmethionine after oral and intravenous administration of its tosylate disulfate salt: a multiple-dose, open-label, parallel-group study in healthy Chinese volunteers. 2009.
- Dietary Supplement S-Adenosyl-l-Methionine (AdoMet) Effects on Plasma Homocysteine Levels in Healthy Human Subjects: A Double-Blind, Placebo-Controlled, Randomized Clinical Trial.
- Mischoulon D, Alpert JE, Arning E, Bottiglieri T, Fava M, Papakostas GI. Bioavailability of S-adenosyl methionine and impact on response in a randomized, double-blind, placebo-controlled trial in major depressive disorder. 2012.
- IUBMB Enzyme Nomenclature. EC 2.5.1.6: methionine adenosyltransferase.
- IUBMB Enzyme Nomenclature. EC 2.1.1.28: phenylethanolamine N-methyltransferase.
- IUBMB Enzyme Nomenclature. EC 2.1.1.6: catechol O-methyltransferase.
- IUBMB Enzyme Nomenclature. EC 2.1.1.17: phosphatidylethanolamine N-methyltransferase.
- Carney MW, Chary TK, Bottiglieri T, Reynolds EH, Toone BK. Switch mechanism in affective illness and oral S-adenosylmethionine (SAM). Br J Psychiatry. 1987;150:724–725.
- Harmand MF, Vilamitjana J, Maloche E, Duphil R, Ducassou D. Effects of S-adenosylmethionine on human articular chondrocyte differentiation. An in vitro study. Am J Med. 1987;83(5A):48–54.