S-adenosilmetionina: metilación, neuroquímica y límites clínicos
Análisis profundo del metabolismo de SAMe: ciclo de metionina y SAH, fosfolípidos de membrana, monoaminas, transulfuración y epigenética. Los mecanismos se contrastan con estudios de depresión, neurodegeneración, colestasis y artrosis; se tratan por separado formulaciones y seguridad.
La S-adenosil-L-metionina, o SAMe, conecta el metabolismo de la metionina, un aminoácido esencial, con reacciones que modifican las propiedades de ácidos nucleicos, proteínas y lípidos. También se denomina ademetionina. Esta molécula se forma en el organismo y se utiliza asimismo en medicamentos y suplementos. La importancia bioquímica de la SAMe endógena y la eficacia de la ademetionina administrada son cuestiones distintas: participar en una reacción necesaria no significa que aumentar su aporte mejore el desenlace clínico.
Para el neurólogo, el psiquiatra o el profesional de la nutrición, el interés por SAMe comienza en el metabolismo de un carbono. La disponibilidad de grupos metilo depende de la alimentación, las enzimas, el estado del hígado, el ciclo del folato y la eliminación de los productos de reacción. En el sistema nervioso, estos procesos se relacionan con la regulación génica, el metabolismo de fosfolípidos y algunas transformaciones de neurotransmisores. Sin embargo, la depresión, el deterioro cognitivo y los trastornos del sueño no se reducen a la falta de un donante de metilo, y la concentración sanguínea de SAMe no describe automáticamente su disponibilidad dentro de una neurona.
Qué transfiere SAMe y por qué importa el centro sulfonio
Los experimentos clásicos de Giulio Cantoni identificaron un donante activado de grupos metilo formado a partir de metionina y ATP. En SAMe, el átomo de azufre está unido a tres sustituyentes carbonados y tiene carga formal positiva. Este centro sulfonio hace que el carbono del metilo unido a él sea accesible al ataque nucleófilo. En una transferencia enzimática habitual, el nucleófilo del sustrato ataca precisamente ese carbono; el metilo pasa al aceptor y el resto de la molécula se convierte en S-adenosilhomocisteína, SAH. Por tanto, el metilo no debe llamarse «grupo saliente»: sale el fragmento unido a él a través del azufre.
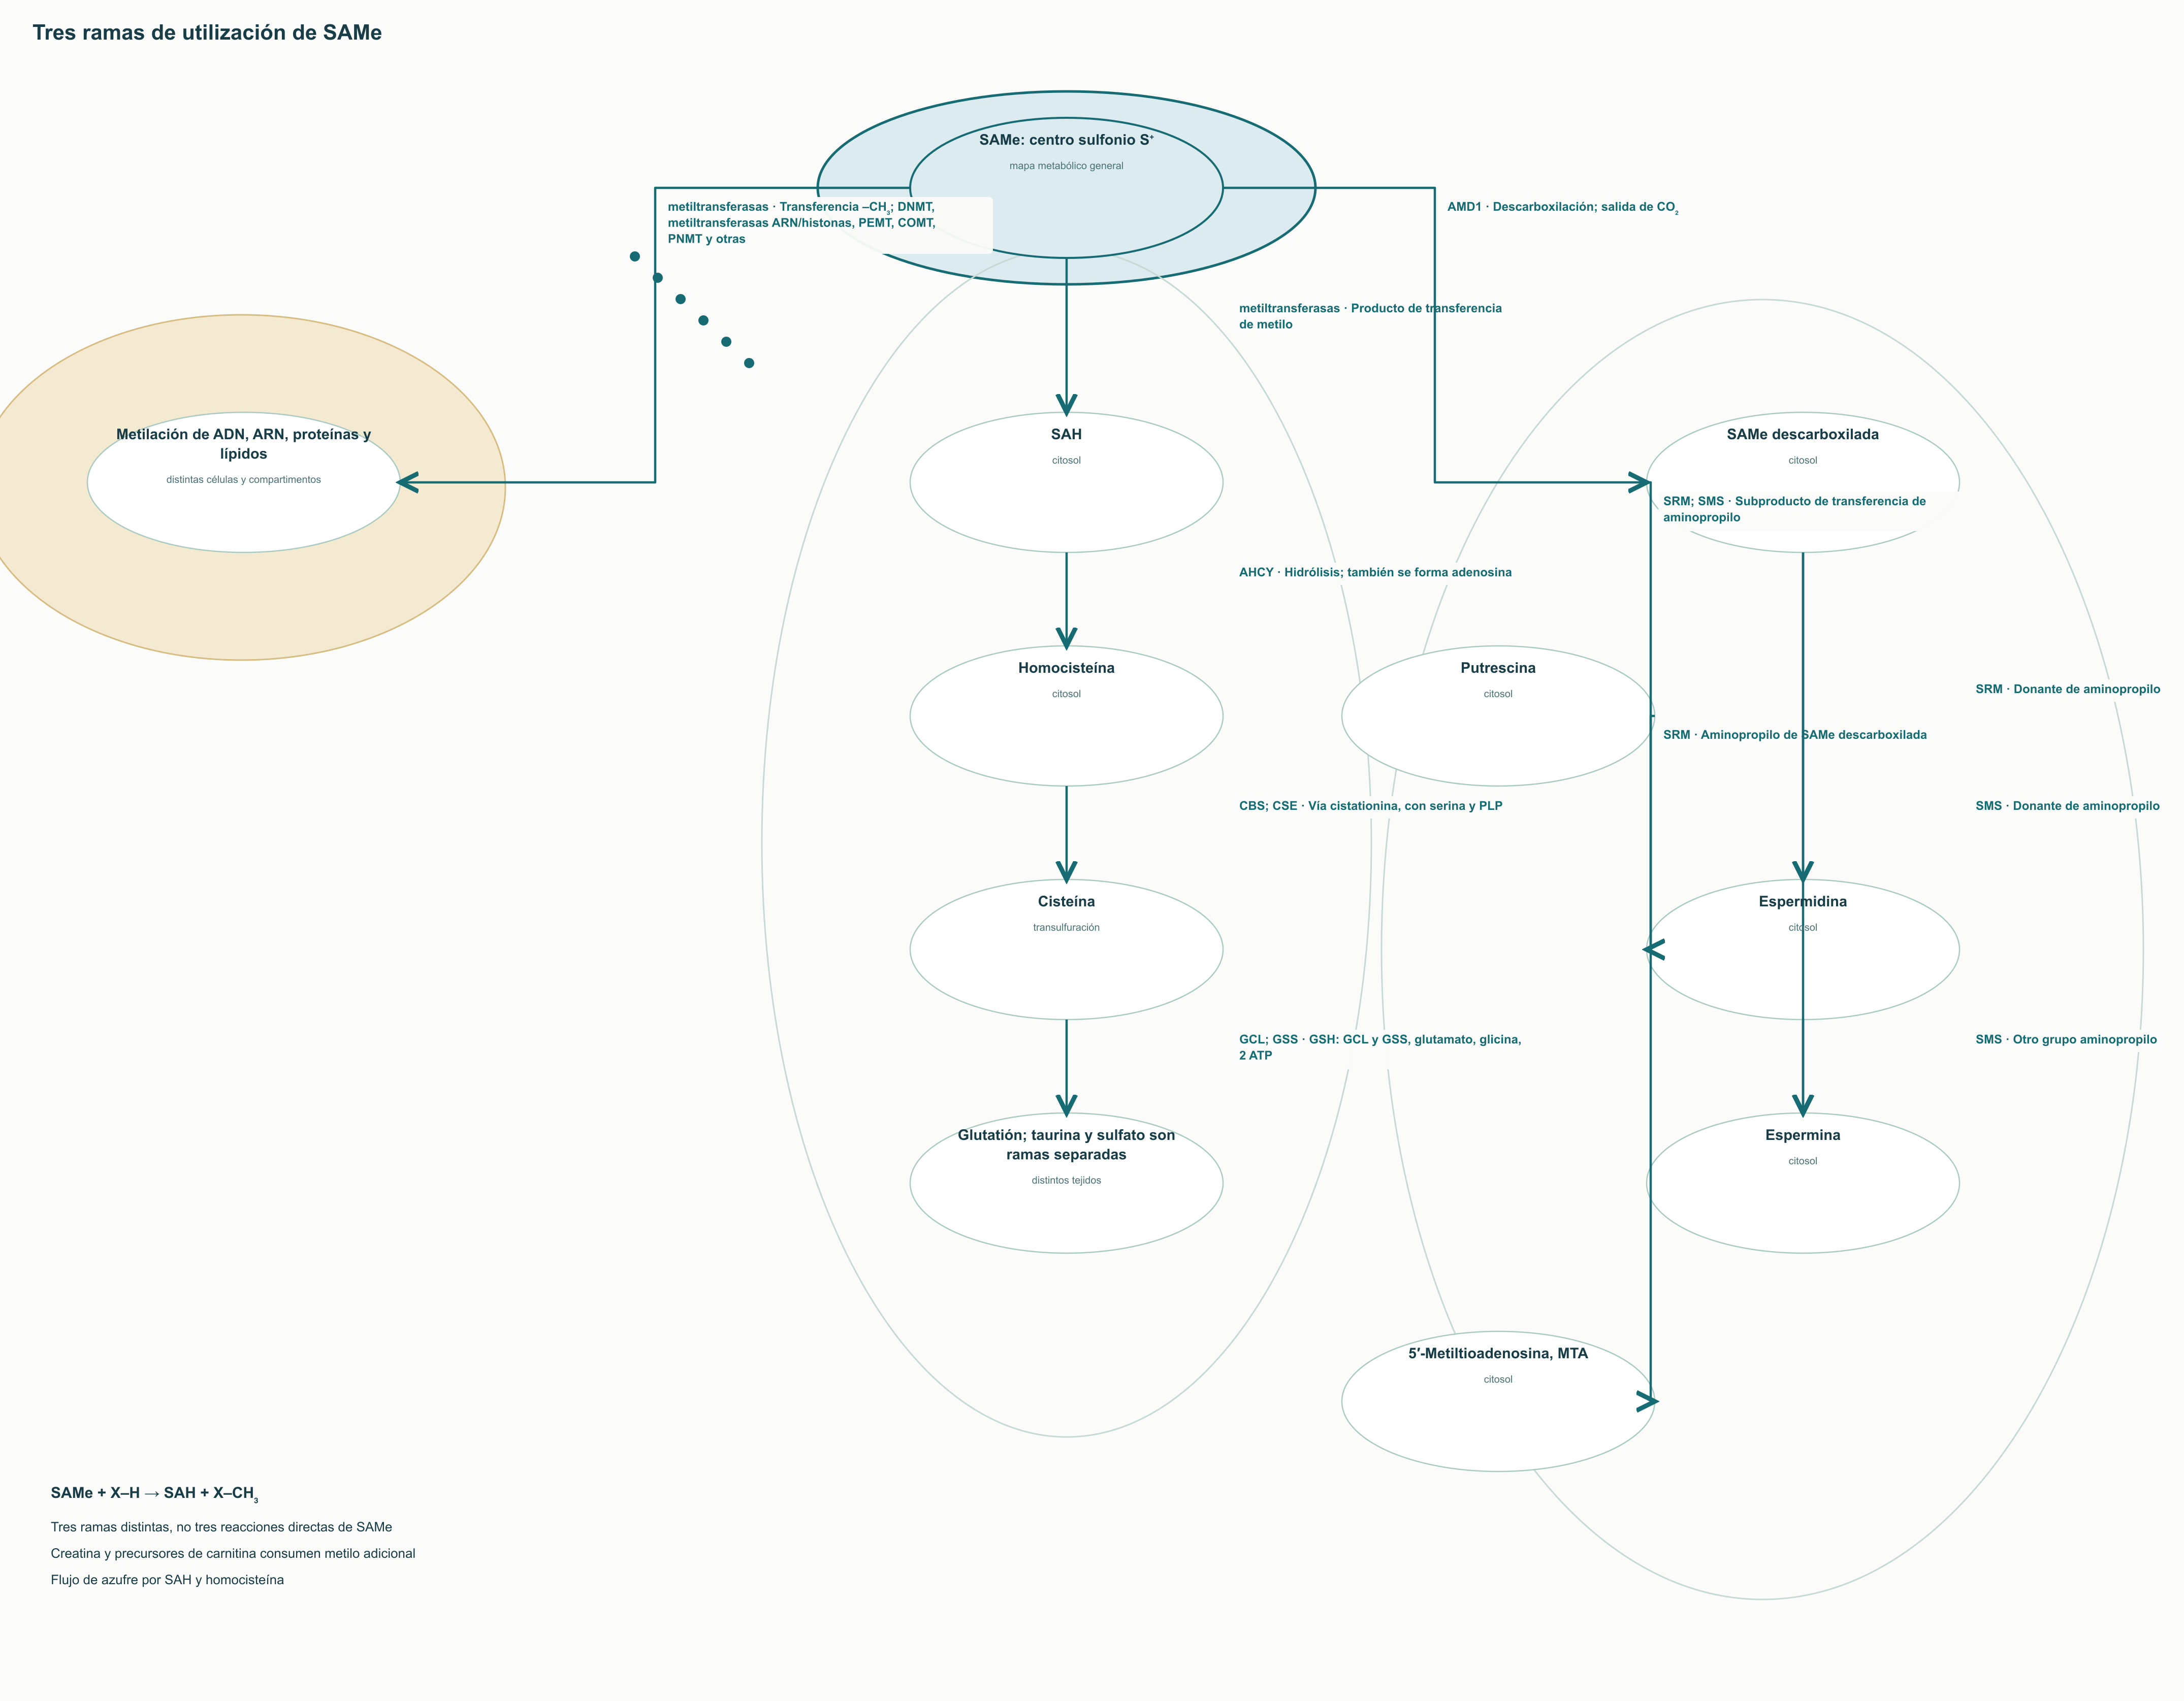
La reacción general puede expresarse como SAMe + X–H → SAH + X–CH₃. X–H representa el grupo funcional del aceptor, y esta notación no establece el mismo balance ácido-base para todas las metiltransferasas. El metilo puede unirse a oxígeno, nitrógeno, azufre o carbono. Para cada reacción hay que considerar la carga del sustrato, la participación enzimática y el entorno local. Comparar una supuesta «energía de hidrólisis del enlace metilo» universal con la hidrólisis del ATP no describe correctamente estas transformaciones: la dirección del flujo depende también de las concentraciones de reactivos y de la eliminación de productos.
SAMe no se utiliza solo para metilar. Tras su descarboxilación por AMD1 se convierte en donante de grupos aminopropilo para formar espermidina y espermina. Otra vía conecta el ciclo de la metionina con la transferencia de azufre a la cisteína a través de la homocisteína. SAMe no se transforma directamente en glutatión: entre ambas moléculas hay varias reacciones. La síntesis de creatina, de determinados precursores proteicos metilados de la carnitina y la metilación de ADN y ARN también consumen este donante, pero difieren en distribución tisular y regulación.
Formación de SAMe: MAT y diferencias entre tejidos
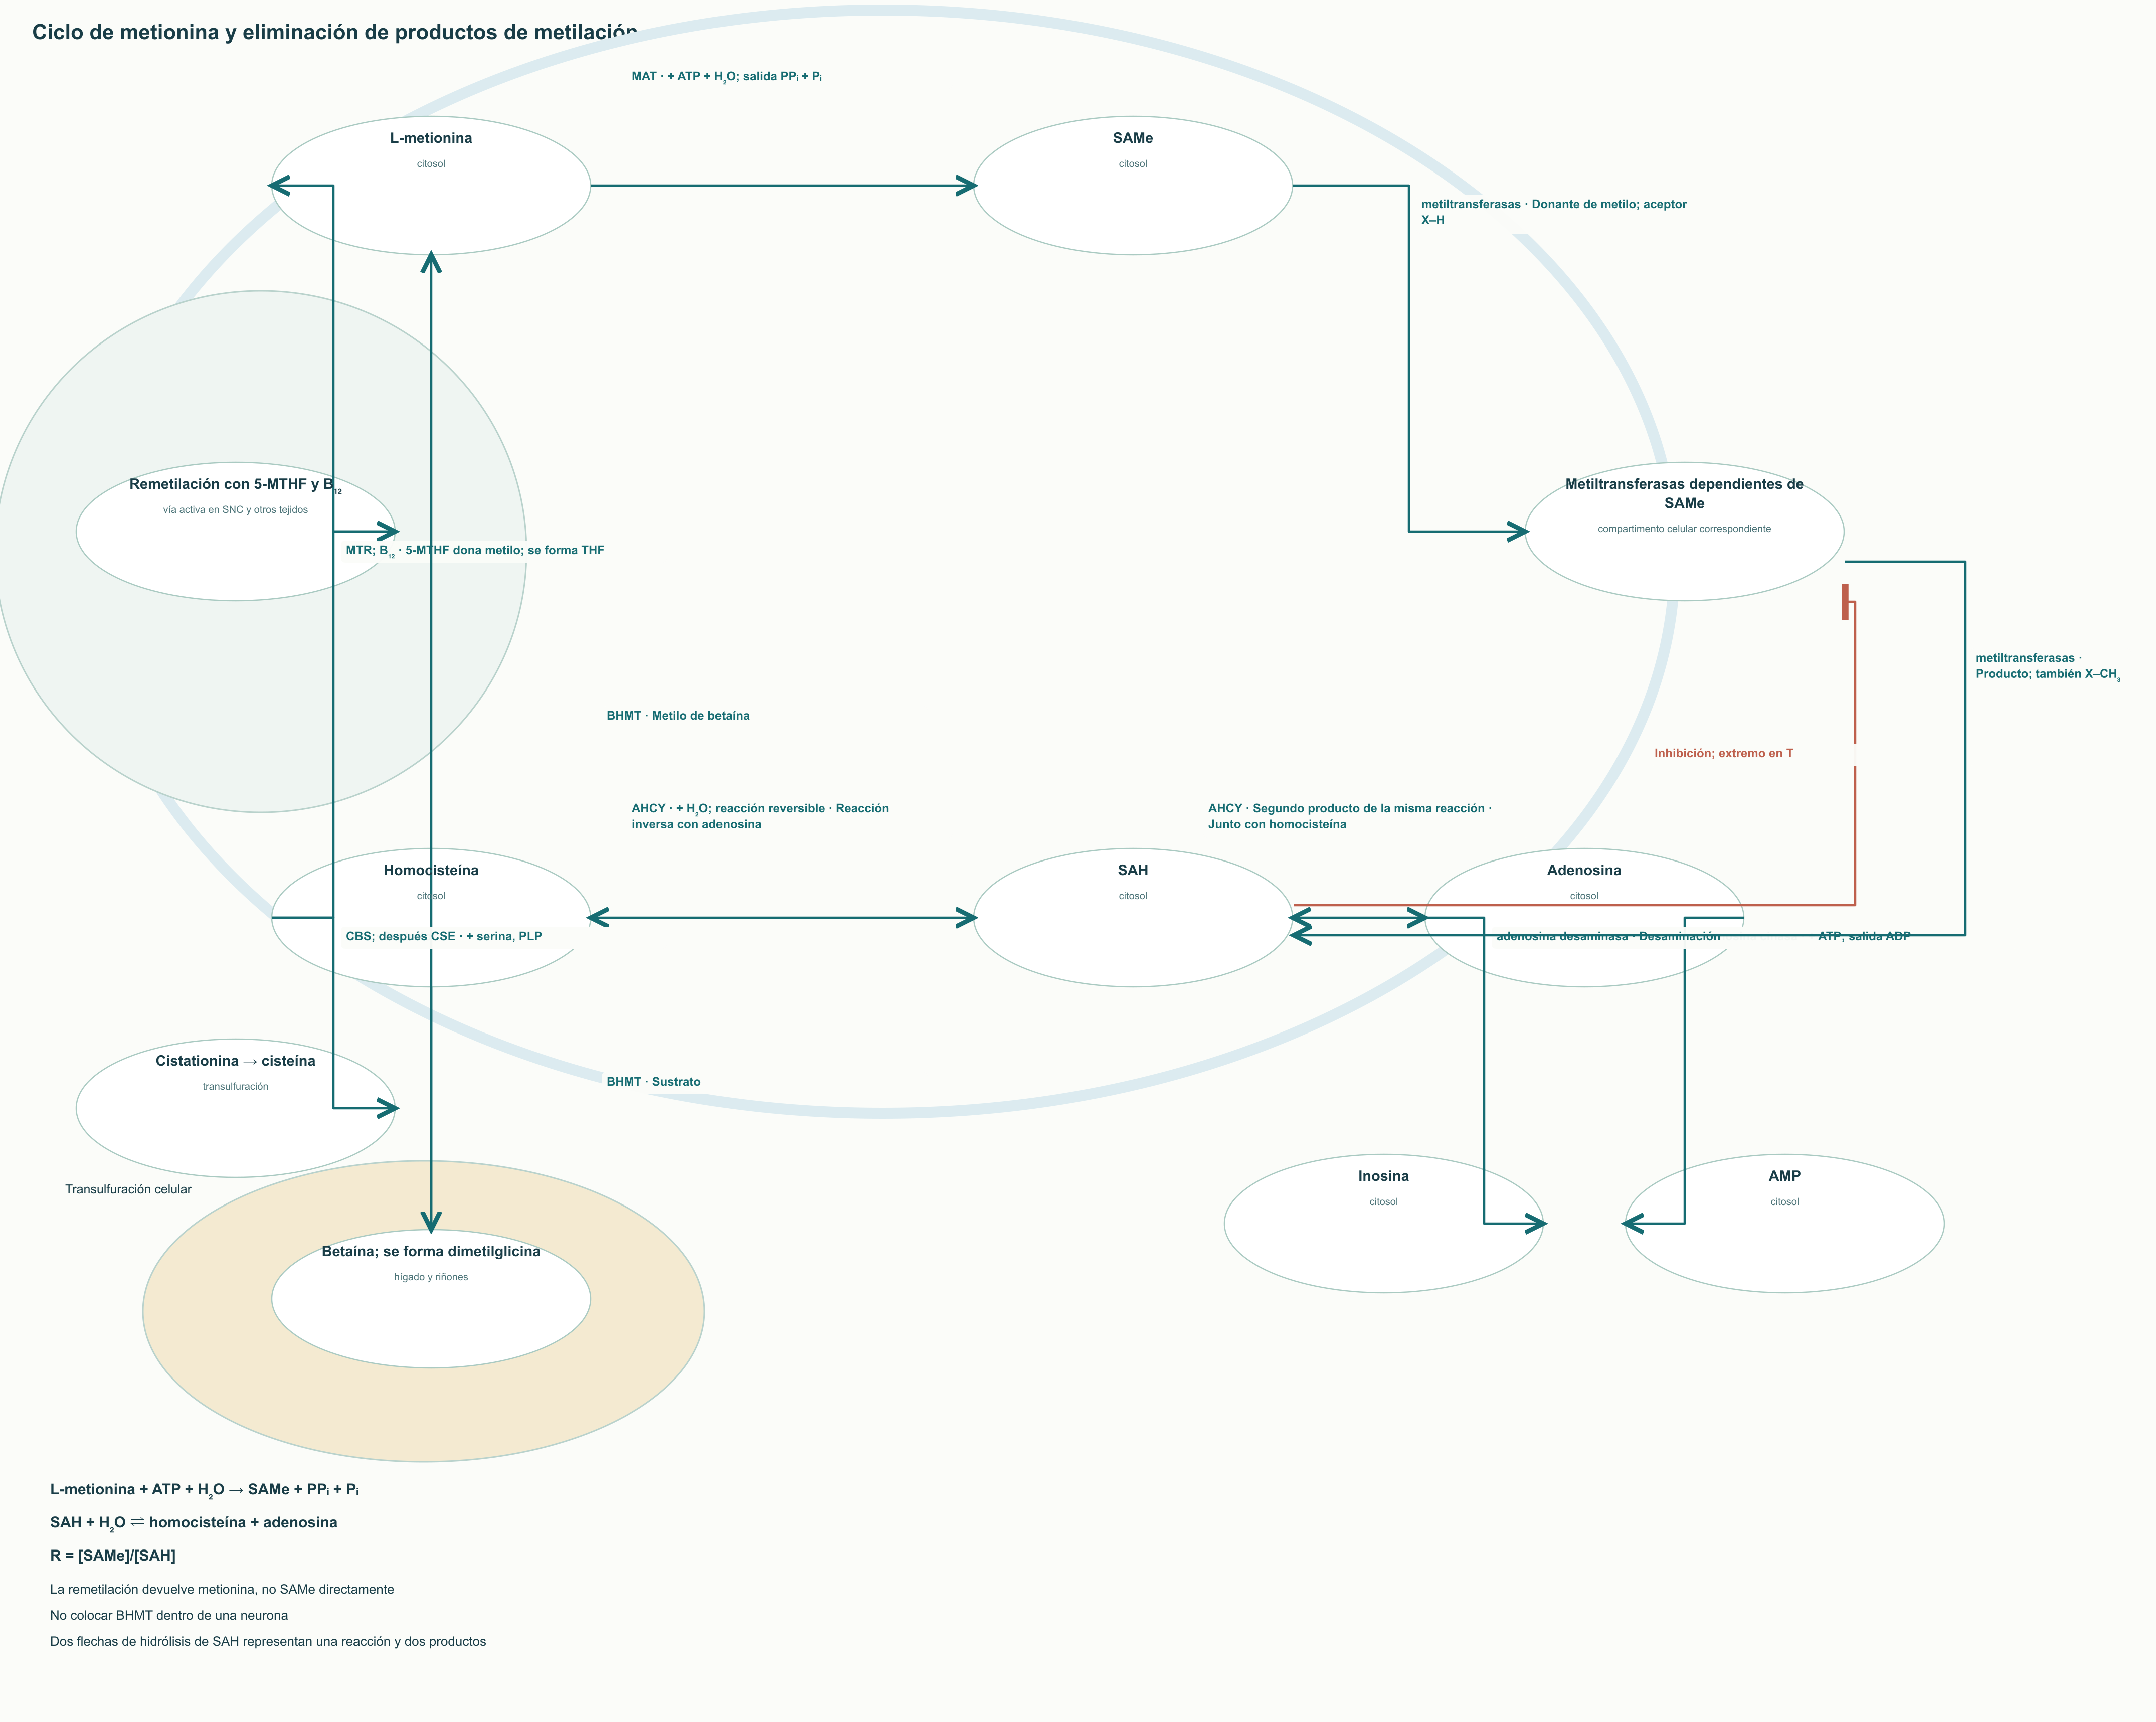
La metionina adenosiltransferasa, MAT, cataliza la formación de SAMe a partir de L-metionina y ATP. La reacción global es:
L-metionina + ATP + H₂O → SAMe + PPᵢ + Pᵢ.
PPᵢ significa pirofosfato inorgánico y Pᵢ, ortofosfato. El azufre de la metionina ataca el carbono 5′ de la porción adenosilo del ATP. El trifosfato liberado se escinde posteriormente durante el proceso catalítico. No interviene una «subunidad tripolifosfatasa» independiente de MAT. Los iones Mg²⁺ y K⁺ participan en el centro catalítico; la eliminación posterior de los productos fosfatados mantiene la dirección de la reacción celular.
En humanos, las subunidades catalíticas están codificadas por MAT1A y MAT2A. MAT1A es especialmente importante en el hígado maduro, mientras que MAT2A tiene amplia expresión extrahepática y es relevante para el tejido nervioso. La proteína reguladora MAT2B interacciona con MAT2A. Esta interacción no puede reducirse a un interruptor único que supuestamente apaga por completo la enzima a una concentración fija de SAMe: los resultados con proteínas purificadas dependen de la construcción, la composición del complejo y las condiciones de medición.
Forma
Base catalítica
Característica habitual
Interpretación
MAT I
Tetrámero de subunidades codificadas por MAT1A
Forma hepática; afinidad relativamente mayor por metionina que MAT III
La diferencia importa para distribuir el flujo, pero el Kₘ de laboratorio no es un umbral clínico
MAT III
Dímero de la misma subunidad MAT1A
Forma hepática capaz de funcionar con un aporte mayor de metionina
La oligomerización cambia la cinética; no capta SAMe ya formada desde la sangre
MAT II
MAT2A catalítica que interacciona con MAT2B
Amplia distribución extrahepática, incluido el SNC
La retroalimentación y estabilización se estudian experimentalmente; no existe un umbral universal de apagado
Kₘ es la concentración de sustrato a la que, en un modelo determinado, la velocidad alcanza la mitad de la máxima. Caracteriza una medición enzimática concreta, no mide directamente la resistencia cerebral a la carencia nutricional. No deben reunirse valores de distintos experimentos en una tabla sin sus condiciones y compararlos después con la metionina del líquido cefalorraquídeo como si fuera una concentración intracelular. El líquido cefalorraquídeo, el plasma, el citosol y el núcleo son entornos metabólicos diferentes.
El hígado desempeña un papel importante en el metabolismo de la metionina. Esto ayuda a comprender por qué la enfermedad hepática puede acompañarse de alteraciones del metabolismo de un carbono, pero no demuestra que MAT III hepática «elimine» la ademetionina oral. MAT forma SAMe a partir de metionina; la absorción y distribución de la molécula ya formada deben establecerse mediante farmacocinética.
Ciclo de la metionina, SAH y significado de la relación SAMe/SAH
La metilación produce SAH, capaz de inhibir numerosas metiltransferasas dependientes de SAMe. Es un producto metabólico normal con función reguladora, no una «toxina extremadamente peligrosa» universal. Su efecto depende de su concentración, de la de SAMe, de la sensibilidad de la enzima y del compartimento celular. DNMT, PRMT, COMT y otras metiltransferasas no comparten una constante de inhibición que describa todas las reacciones.
La hidrolasa de SAH, codificada por AHCY, cataliza la transformación reversible:
SAH + H₂O ⇌ L-homocisteína + adenosina.
En un sistema aislado, el equilibrio favorece la formación de SAH. En la célula, la hidrólisis se sostiene retirando productos: la adenosina puede fosforilarse a AMP por la adenosina cinasa o desaminarse a inosina, y la homocisteína se utiliza en remetilación o transulfuración. Los productos no necesitan estar a concentraciones «casi nulas»; importan las relaciones reales entre concentraciones y flujos. La acumulación de homocisteína puede favorecer la de SAH, pero no implica un bloqueo inmediato y completo de toda metilación.
La metionina sintasa MTR transfiere un metilo del 5-metiltetrahidrofolato a la homocisteína con participación de cobalamina. La expresión simplificada es homocisteína + 5-MTHF → metionina + tetrahidrofolato. MTRR mantiene el estado funcional de la metionina sintasa y MTHFR participa en la formación de 5-MTHF. Hígado y riñones utilizan además la betaína-homocisteína metiltransferasa BHMT: homocisteína + betaína → metionina + dimetilglicina. Esta reacción no debe dibujarse como una vía de acción directa de la betaína dentro de la neurona.
La relación SAMe/SAH suele llamarse potencial de metilación:
R = [SAMe]/[SAH].
Cuando ambas concentraciones se expresan en las mismas unidades, R es adimensional. Ayuda a comparar el metabolismo de un carbono dentro de un estudio, pero no sustituye la medición de actividad de una metiltransferasa concreta. La misma relación puede proceder de concentraciones absolutas distintas, y un extracto tisular completo oculta diferencias entre núcleo, citosol y tipos celulares.
Por ello, un intervalo de 4–6 como «óptimo» y valores inferiores a 2 como diagnóstico de «bloqueo de metilación» no sirven universalmente en clínica. No puede fijarse una norma común para plasma y líquido cefalorraquídeo sin método, preparación de muestra, población de referencia y relación demostrada con un desenlace. Un cambio de R no predice por sí solo depresión, rigidez de membranas ni un patrón específico de expresión génica. La metilación de un promotor puede disminuir la transcripción, pero la metilación del ADN en otras regiones y la de histonas tienen funciones mucho más diversas.
Es más útil comenzar por la pregunta clínica. Ante macrocitosis, manifestaciones neurológicas, dietas restrictivas o sospecha de malabsorción, se investigan las causas pertinentes de déficit de B₁₂ y folato; la homocisteína se interpreta considerando función renal, nutrición y medicamentos. MTHFR C677T puede influir en el metabolismo del folato, pero no determina un diagnóstico de depresión ni indica SAMe automáticamente. La medición investigadora de SAMe y SAH debe responder a una pregunta previa, no convertirse en objetivo terapéutico independiente.
Fosfatidilcolina: vía PEMT y biofísica de membranas
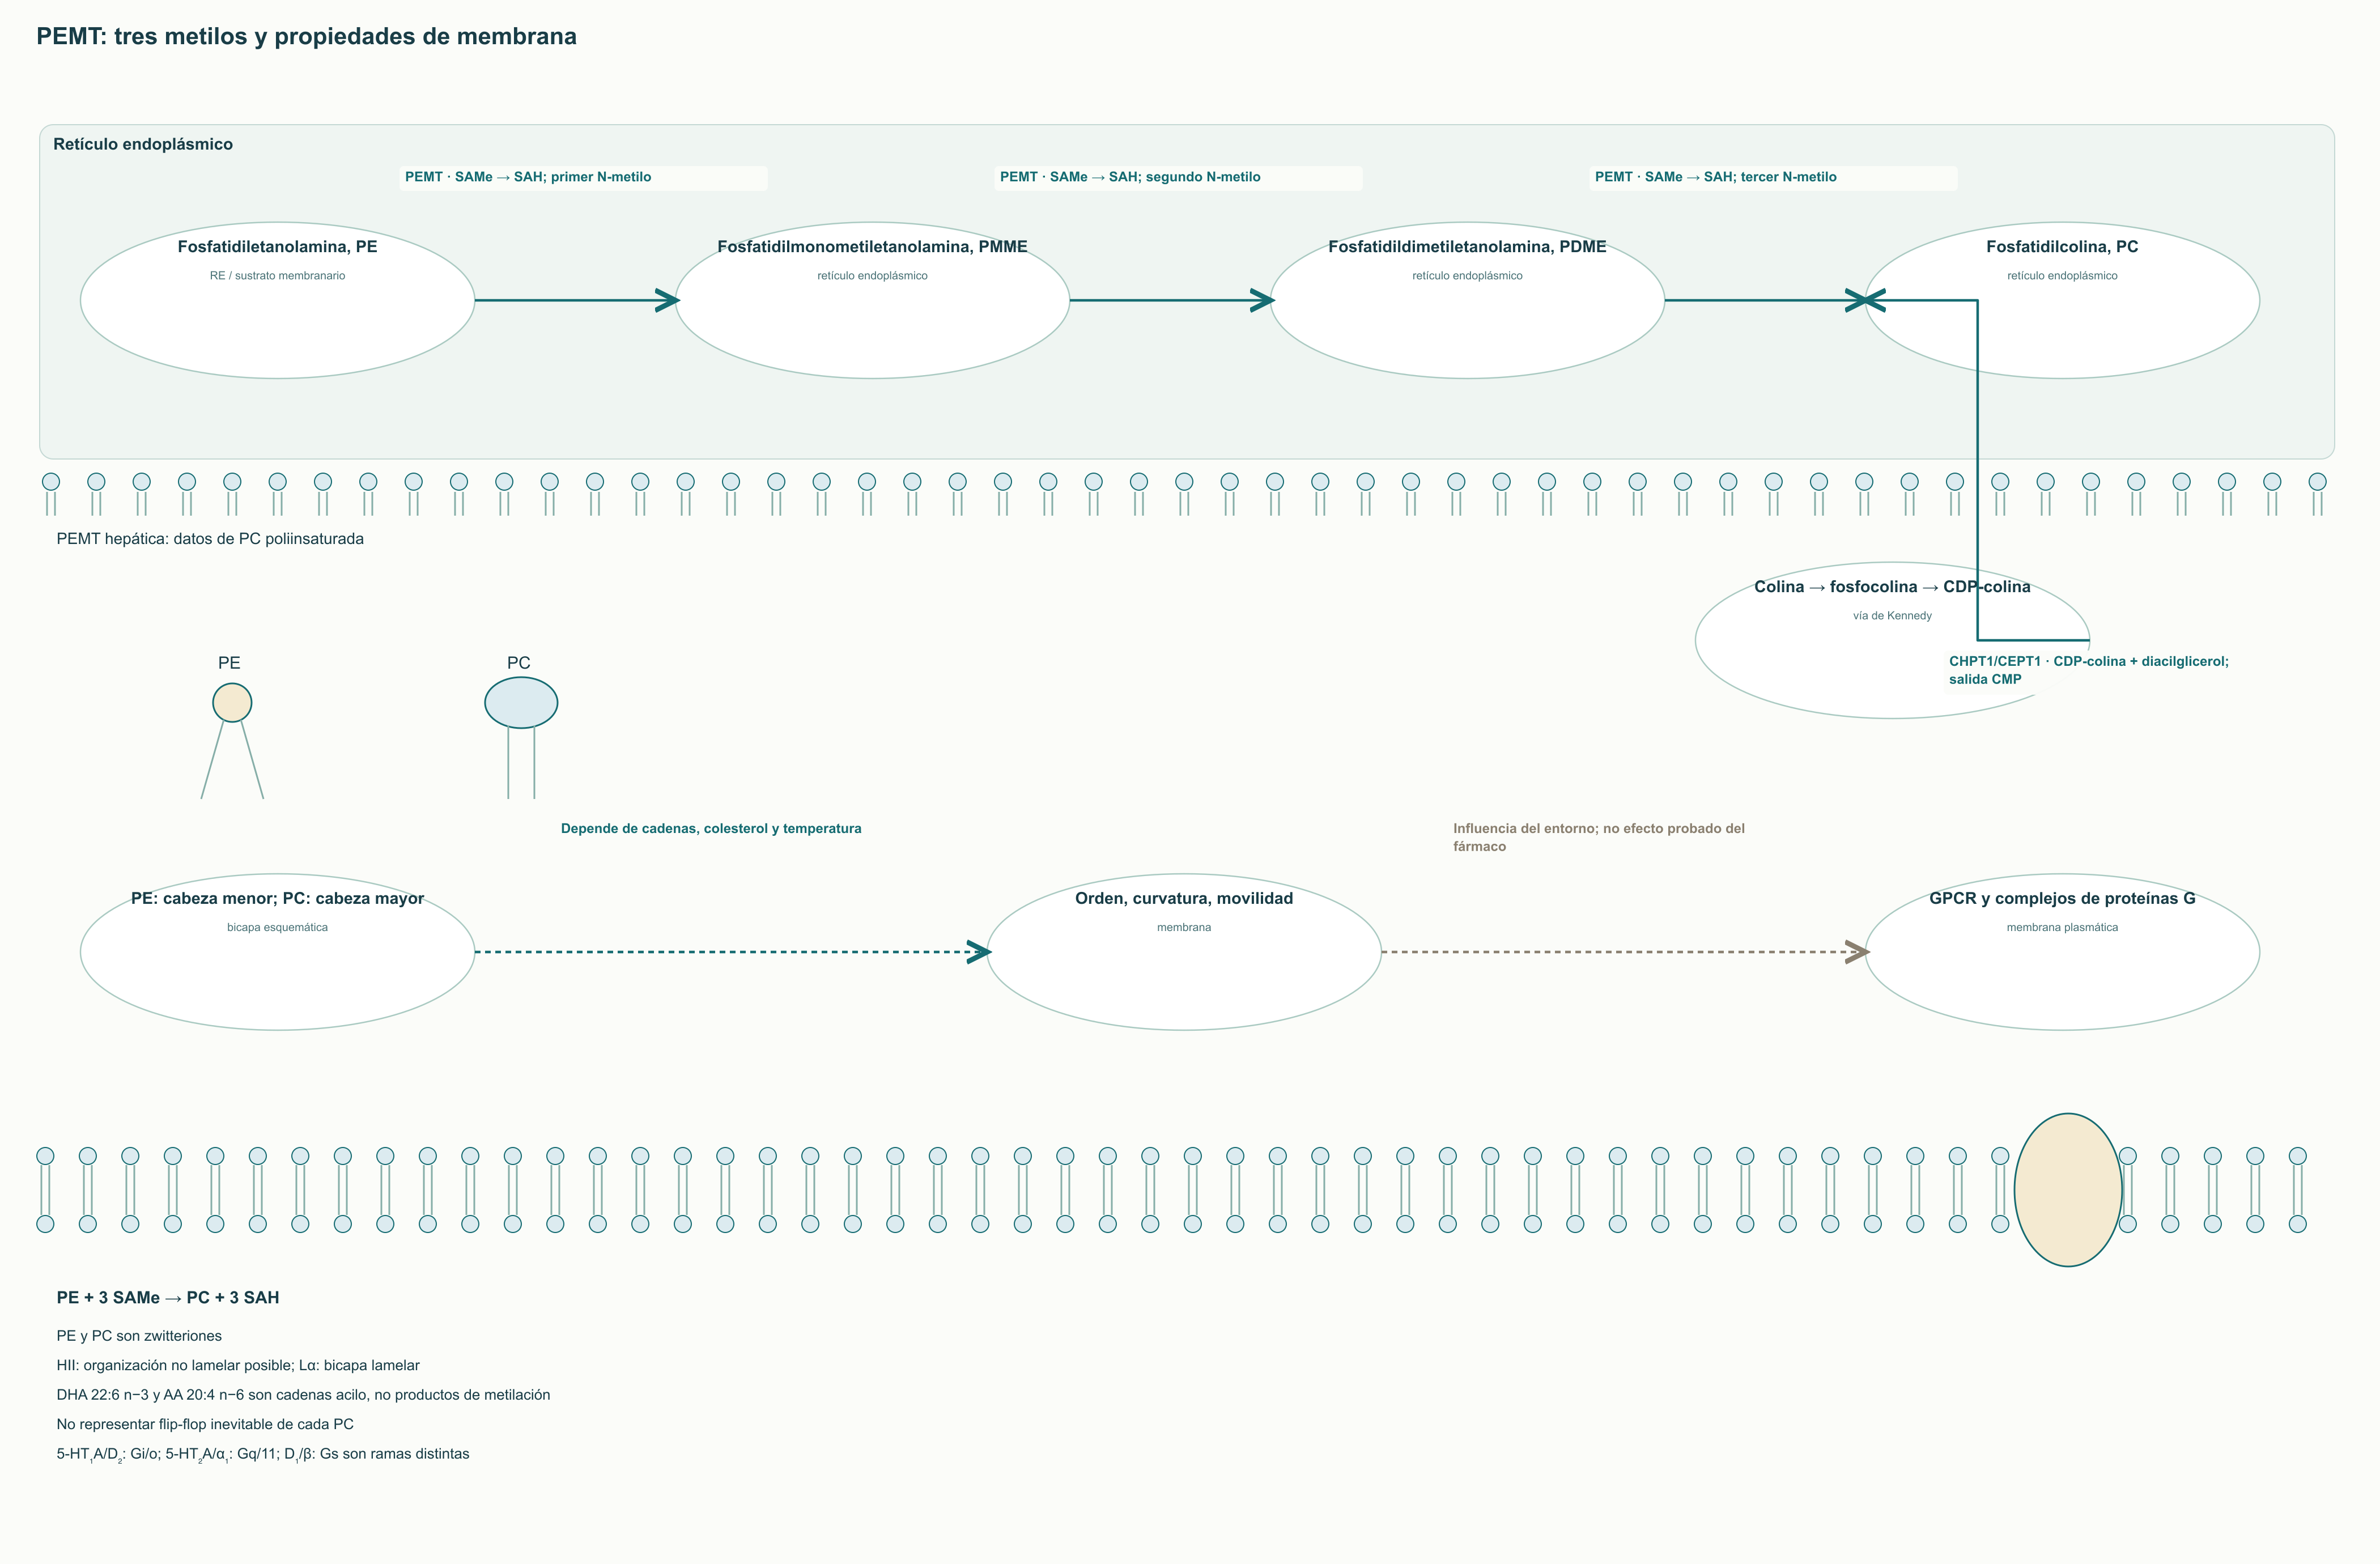
La fosfatidilcolina, PC, y la fosfatidiletanolamina, PE, son glicerofosfolípidos principales de las membranas. No representan toda la composición de membranas sinápticas y mielina: también importan colesterol, esfingolípidos y otras clases lipídicas. La PC se forma por la vía de Kennedy de CDP-colina y mediante metilación secuencial de PE. En esta última, PEMT consume tres moléculas de SAMe por cada PC final.
Los intermediarios siguen la secuencia PE → PMME → PDME → PC. PMME es fosfatidilmonometiletanolamina y PDME, fosfatidildimetiletanolamina. En cada paso SAMe se convierte en SAH. En conjunto: PE + 3 SAMe → PC + 3 SAH. PEMT se asocia al retículo endoplásmico y a membranas en contacto con mitocondrias; su papel cuantitativo se ha estudiado de forma más convincente en el hígado. La vía de Kennedy utiliza colina, CTP y diacilglicerol y abastece ampliamente de PC a los tejidos.
Los estudios humanos con marcadores isotópicos mostraron que la vía hepática PEMT produce preferentemente determinadas especies poliinsaturadas de PC, sobre todo las que contienen ácido docosahexaenoico, DHA, 22:6 n−3. Entre los ácidos grasos relevantes también figura el araquidónico, 20:4 n−6. Metilar la cabeza de PE no sintetiza DHA ni ácido araquidónico. Las cadenas acilo dependen de los sustratos disponibles y de la remodelación lipídica. Tampoco debe describirse Kennedy como fuente exclusiva de PC saturada, ni las mediciones hepáticas como prueba del mismo flujo sináptico.
Las cabezas de PC y PE son zwitteriónicas en condiciones fisiológicas: contienen cargas positivas y negativas, con carga total aproximadamente nula. La cabeza relativamente pequeña de PE favorece, en condiciones adecuadas, la curvatura negativa y estructuras no lamelares HⅡ. PC tiene una cabeza mayor, y muchas de sus especies favorecen la bicapa lamelar Lα. Este modelo geométrico ayuda a entender flexión y fusión de membranas, pero no permite equiparar toda PE con «rigidez» ni toda PC con mayor fluidez. La longitud e insaturación de las cadenas, el colesterol, la temperatura y el entorno proteico modifican el resultado.
En experimentos históricos con membranas eritrocitarias, metilar PE se acompañaba de mayor movilidad membranaria. Los estudios de preparaciones de membrana y sinaptosomas originaron la hipótesis de conexión entre metilación de fosfolípidos y señalización. Sin embargo, no se ha establecido una reducción universal de anisotropía del 18–25% tras SAMe en el cerebro humano. La sonda fluorescente DPH refleja movilidad rotacional y orden del entorno en un experimento concreto; no mide directamente toda difusión lateral de proteínas ni la «plasticidad» cerebral clínica.
Las balsas lipídicas y otros dominios modifican la disponibilidad de socios proteicos y la organización de complejos de señalización. Los receptores 5-HT₁A, 5-HT₂A, D₁, D₂, α₁ y β-adrenérgicos emplean distintas proteínas G y sistemas efectores. El AMPc se relaciona con adenilato ciclasa; IP₃ y DAG, con fosfolipasa C: no forman una única vía común. Un receptor puede interactuar con un complejo preorganizado, sin requerir un desplazamiento prolongado por la membrana para cada señal. No se ha demostrado que SAMe restaure Bₘₐₓ de todos estos receptores humanos o corrija invariablemente su desacoplamiento de proteínas G.
Monoaminas: metilaciones directas y conexiones indirectas
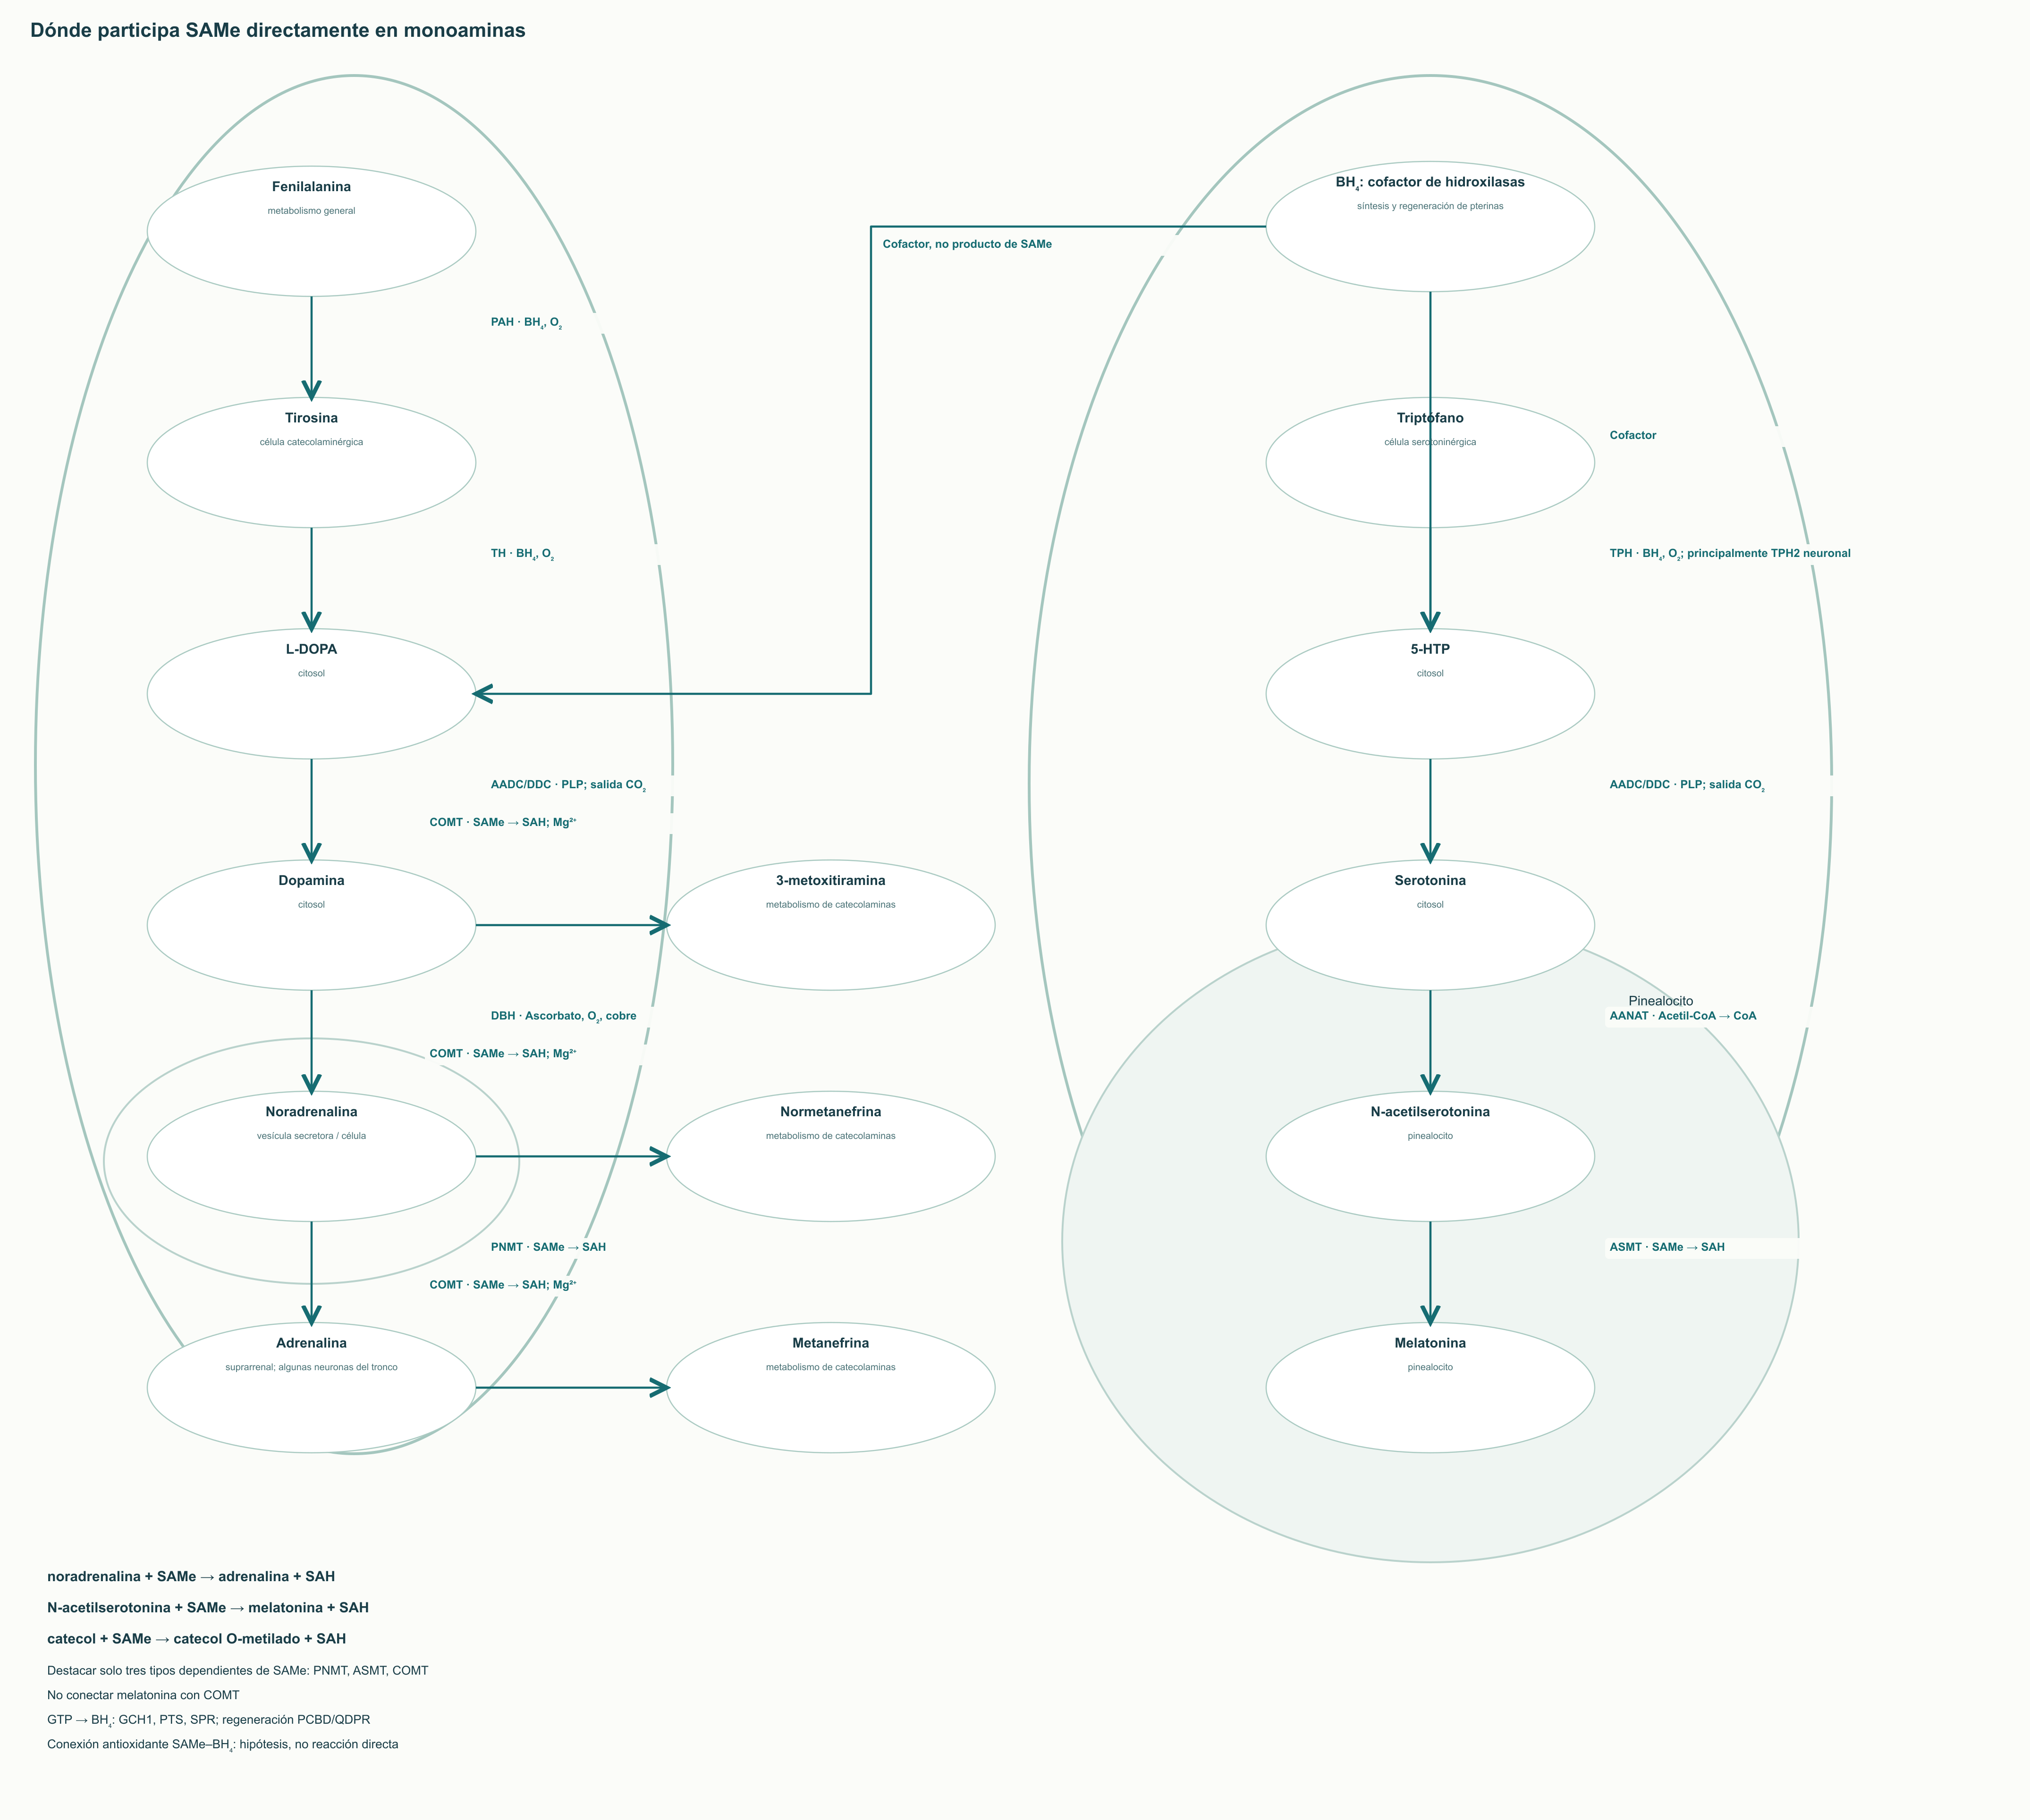
SAMe se consume directamente en determinadas transformaciones de monoaminas, pero no es sustrato para formar dopamina desde L-DOPA ni serotonina desde 5-HTP. Hay que distinguir cuatro procesos: síntesis del neurotransmisor, transporte y liberación, señalización del receptor e inactivación metabólica. Alterar uno de ellos no determina inequívocamente la concentración final en la sinapsis.
Noradrenalina y adrenalina
La feniletanolamina N-metiltransferasa PNMT transfiere un metilo al nitrógeno de la noradrenalina:
noradrenalina + SAMe → adrenalina + SAH.
Es una reacción importante de la médula suprarrenal y de pequeñas poblaciones de neuronas adrenérgicas del tronco cerebral. C₁, C₂ y C₃ designan grupos diferentes; no pueden situarse todos en una única región ventrolateral rostral. La participación de SAMe no demuestra que la fatiga habitual o el enlentecimiento psicomotor se deban a insuficiencia de PNMT, ni convierte la ademetionina en un tratamiento del tono vascular. No debe utilizarse una constante de inhibición única de PNMT sin respaldo para interpretar la clínica.
Tetrahidrobiopterina e hidroxilasas
La tirosina hidroxilasa TH forma L-DOPA desde tirosina, y la triptófano hidroxilasa TPH forma 5-HTP desde triptófano. Ambas utilizan tetrahidrobiopterina, BH₄, oxígeno molecular y hierro del centro activo. BH₄ se sintetiza desde GTP mediante GCH1, PTS y SPR y se regenera tras la hidroxilación mediante PCBD/QDPR. Las alteraciones de estas vías muestran la importancia del cofactor para las monoaminas.
El estrés oxidativo puede afectar la disponibilidad de pterina reducida. La función de BH₄/BH₂ y el «desacoplamiento» se han estudiado especialmente en NO sintasas; no debe atribuirse automáticamente el mismo mecanismo a TH y TPH ni llamarse irreversible a la competencia de BH₂. La conexión de SAMe con el metabolismo de tioles hace plausible un efecto redox, pero no se ha establecido una restauración directa de BH₄ clínicamente significativa tras tomar SAMe. Metilar regiones reguladoras de GCH1 tampoco implica activación obligatoria: la dirección depende de la región y de la célula.
Serotonina y melatonina
En la glándula pineal, AANAT acetila primero la serotonina utilizando acetil-CoA y forma N-acetilserotonina. ASMT, históricamente llamada HIOMT, transfiere después un metilo al oxígeno del grupo 5-hidroxilo:
N-acetilserotonina + SAMe → melatonina + SAH.
La dependencia de SAMe está confirmada bioquímica y estructuralmente. Sin embargo, el ritmo diario de melatonina depende también de la iluminación, regulación simpática, actividad de AANAT y estado pineal. Insomnio o anhedonia no diagnostican déficit de SAMe, y la participación de ASMT no demuestra eficacia de ademetionina para trastornos del sueño.
COMT y eliminación de catecolaminas
La catecol-O-metiltransferasa COMT utiliza SAMe y Mg²⁺ para metilar el grupo catecol. La dopamina puede convertirse en 3-metoxitiramina, la noradrenalina en normetanefrina y la adrenalina en metanefrina. La degradación posterior incluye otras enzimas, como monoaminooxidasas. Serotonina y melatonina no son catecolaminas, por lo que no deben incluirse en una flecha común de «inactivación por COMT».
DAT es menos abundante en la corteza prefrontal que en otras regiones dopaminérgicas, pero no está completamente ausente. También importan el transportador de noradrenalina, la difusión y el metabolismo. Atribuir a COMT una proporción humana constante superior al 60% ignora la región y el método. La variante funcional rs4680 corresponde a Val158Met en COMT de membrana y modifica estabilidad y actividad. Estos datos no establecen una proporción universal de actividad en cada portador ni justifican elegir SAMe por un genotipo. Como COMT participa en la inactivación, más donante no equivale a más dopamina o mejor memoria de trabajo.
Transulfuración: de homocisteína a cisteína y glutatión
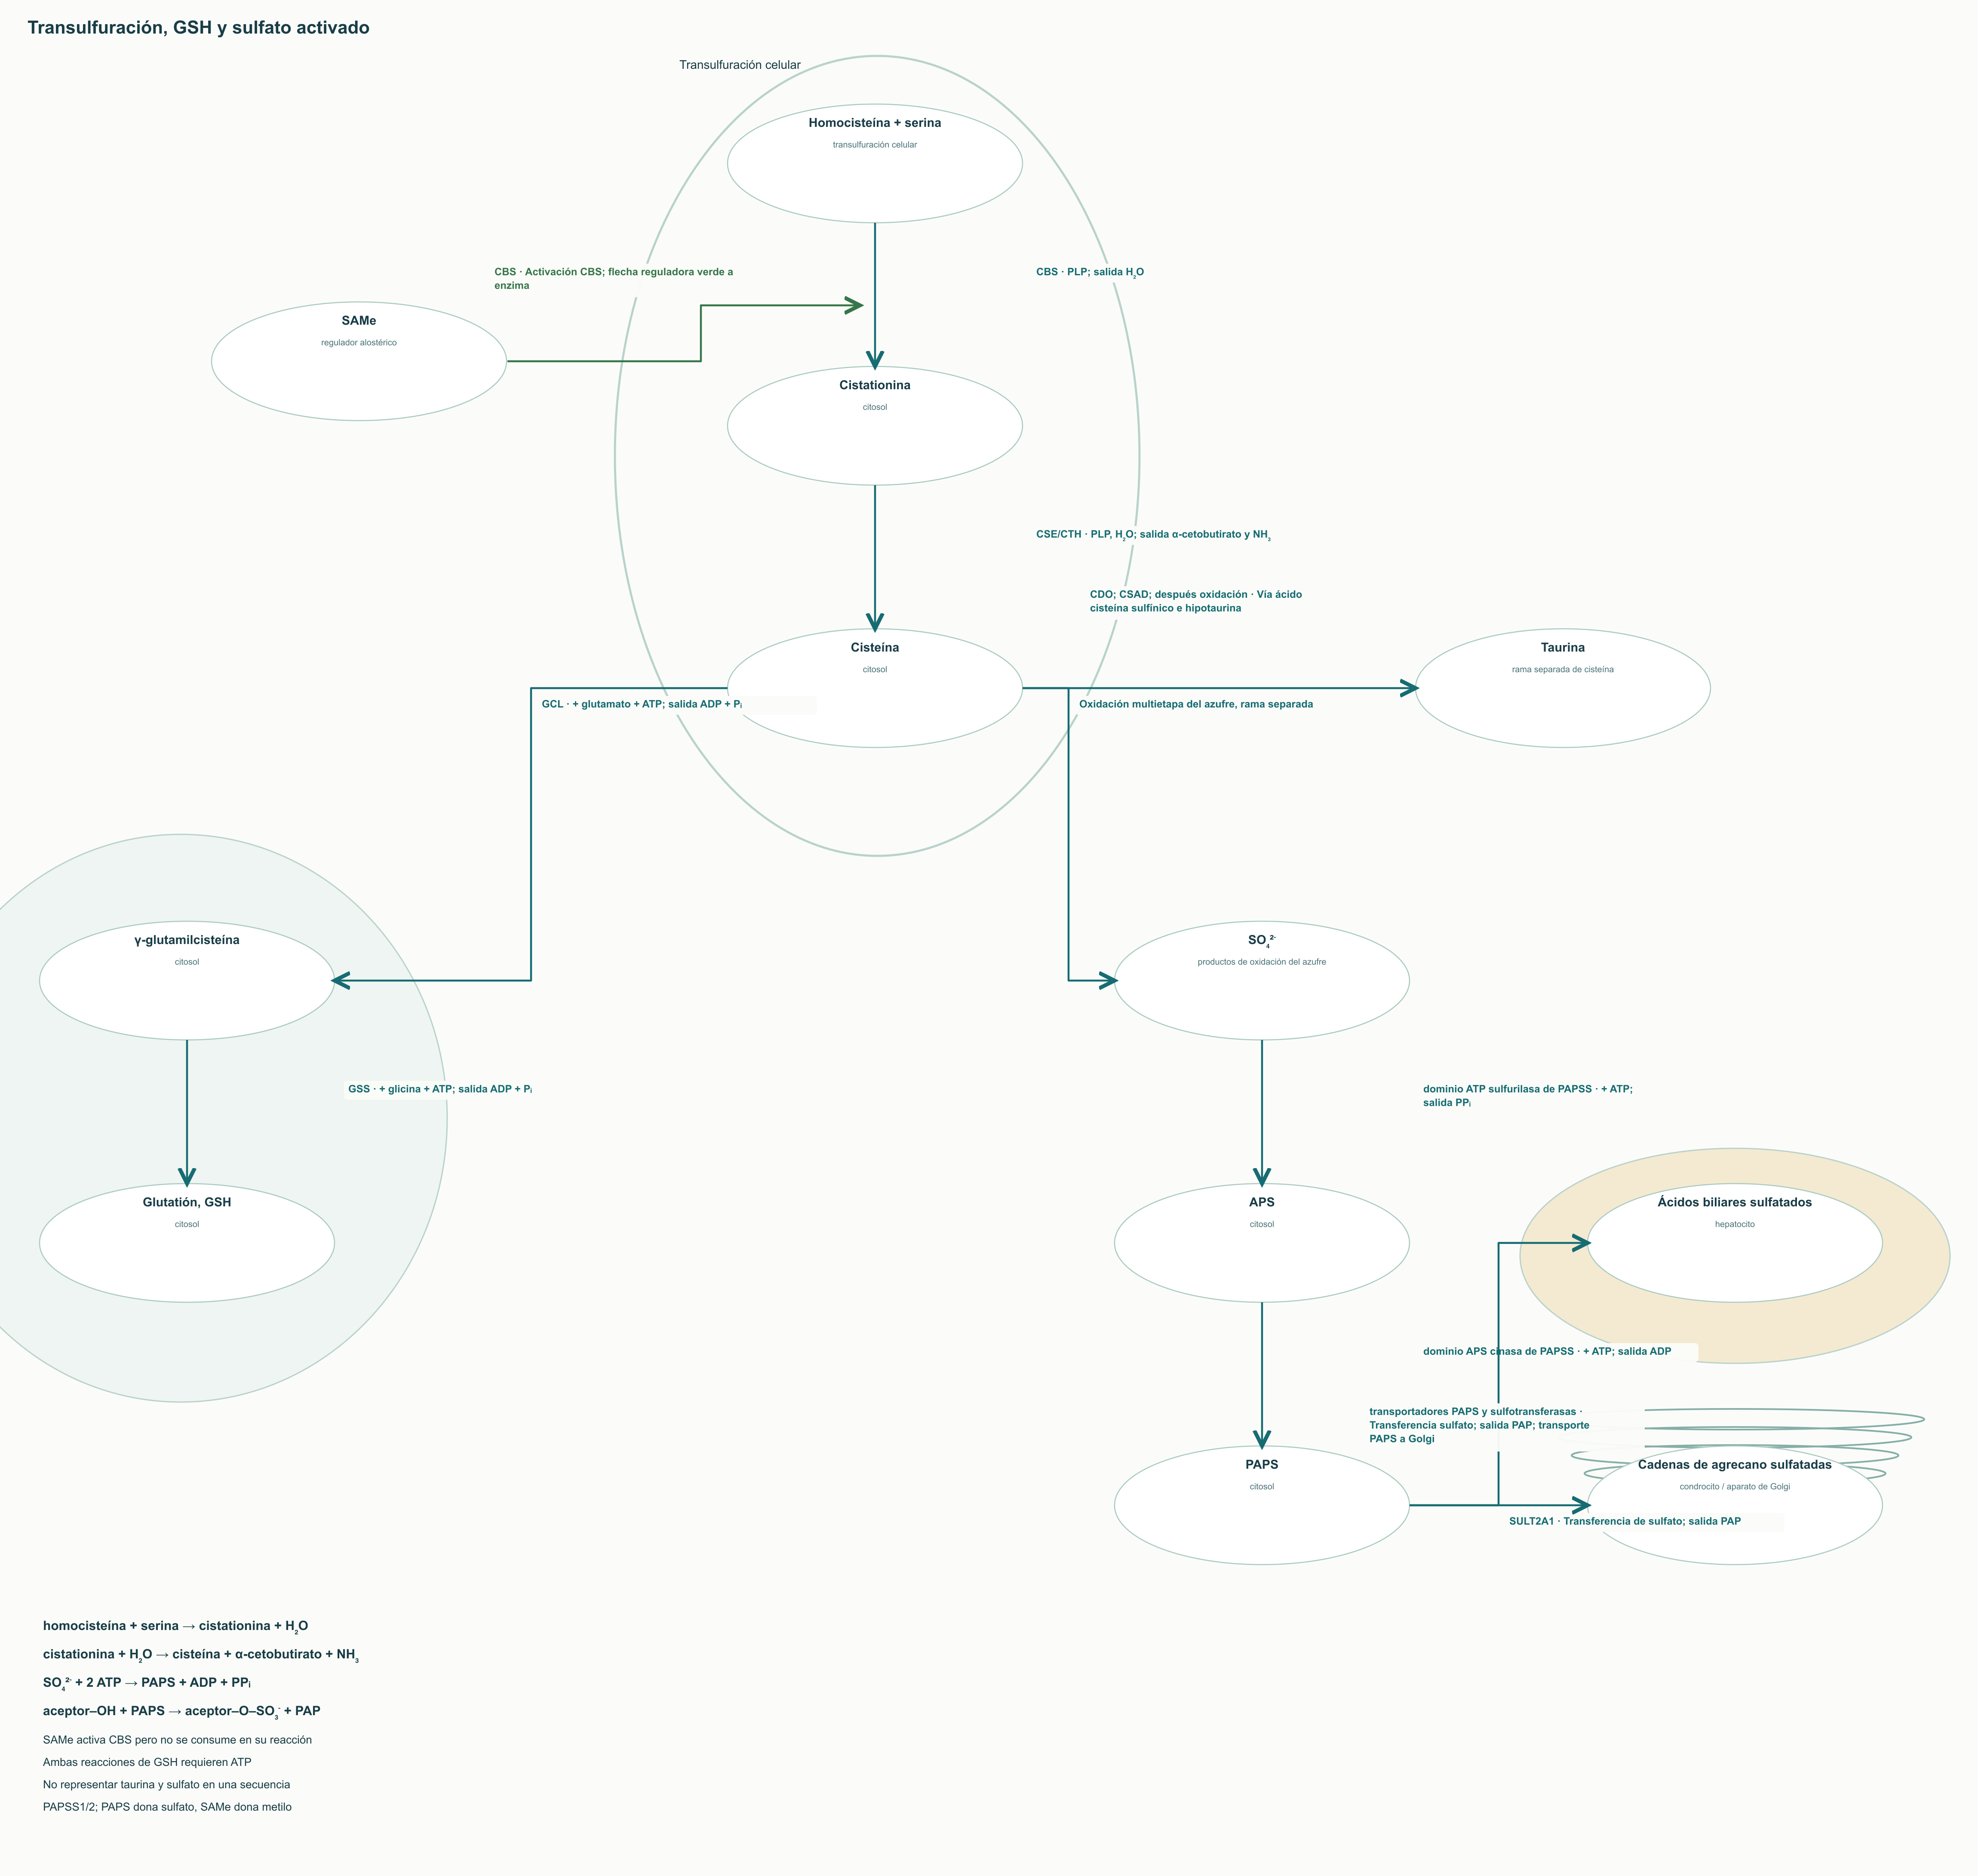
La homocisteína está en la bifurcación entre conservar metionina y utilizar su azufre. La cistationina β-sintasa CBS combina homocisteína y serina: homocisteína + serina → cistationina + H₂O. Después, la cistationina γ-liasa CSE, codificada por CTH, produce cisteína, α-cetobutirato y amoníaco. Incluyendo agua, el segundo paso es cistationina + H₂O → cisteína + α-cetobutirato + NH₃. Según el pH, el amoníaco se encuentra principalmente como NH₄⁺; las abreviaciones no deben ocultar los demás productos.
Ambas enzimas utilizan piridoxal-5′-fosfato, PLP, derivado de vitamina B₆. CBS contiene además hemo y un dominio regulador Bateman. SAMe se une a ese dominio y puede aumentar la actividad modificando la interacción entre regiones catalítica y reguladora. Lo confirman estudios estructurales de la enzima humana. Pero la activación in vitro no predice cuánto aumentará la transulfuración con una dosis oral concreta.
La cisteína participa en dos reacciones dependientes de ATP para sintetizar glutatión. La glutamato-cisteína ligasa GCL, antes γ-GCS, forma γ-glutamilcisteína a partir de glutamato y cisteína; la glutatión sintetasa GSS añade glicina. La expresión global simplificada es glutamato + cisteína + glicina + 2 ATP → GSH + 2 ADP + 2 Pᵢ. El glutatión reducido participa en glutatión peroxidasas y otros sistemas; tras oxidarse a GSSG, la glutatión reductasa lo regenera usando NADPH.
La disponibilidad de cisteína puede limitar el proceso, pero no es el único factor. Importan aporte de aminoácidos, transporte intercelular, expresión de GCL, energía y consumo de GSH. La contribución cerebral de la transulfuración varía entre tipos celulares; no cabe un porcentaje para todo el SNC. Tampoco cualquier descenso de SAMe apaga CBS y desencadena inevitablemente ferroptosis. La protección de GSH frente a peroxidación lipídica explica el interés investigador, pero no se ha demostrado por separado prevención clínica de ferroptosis con ademetionina.
La cisteína puede originar taurina y productos de oxidación del azufre, incluido sulfato. Son ramas distintas. El sulfato se utiliza tras activarse: sulfato + ATP → APS + PPᵢ y luego APS + ATP → PAPS + ADP. La reacción global es:
SO₄²⁻ + 2 ATP → PAPS + ADP + PPᵢ.
APS es adenosina-5′-fosfosulfato y PAPS, 3′-fosfoadenosina-5′-fosfosulfato. PAPSS1 y PAPSS2 reúnen funciones ATP sulfurilasa y APS cinasa. PAPS dona el sulfato a sulfotransferasas y se convierte en PAP, 3′-fosfoadenosina-5′-fosfato. Ni SAMe ni sulfato libre sustituyen esta activación.
Hígado y cartílago: metabolismo compartido, preguntas clínicas diferentes
Fosfolípidos biliares y colestasis intrahepática
ABCB4, también MDR3, transfiere PC en la membrana canalicular del hepatocito y permite su entrada en bilis. Los fosfolípidos forman micelas mixtas con ácidos biliares y colesterol. PEMT hepática, síntesis de GSH y sulfatación de algunos ácidos biliares explican el interés por SAMe en el metabolismo hepatocelular. SULT2A1 utiliza PAPS para sulfatar sustratos relevantes, modificando potencialmente propiedades y eliminación.
Estas conexiones no demuestran que ademetionina restaure MDR3 «fluidificando» la membrana en cualquier paciente. La colestasis puede deberse a defectos genéticos de transportadores, medicamentos, obstrucción y otras causas. La colestasis intrahepática del embarazo suele aparecer en la segunda mitad y se relaciona con factores hormonales y genéticos, pero no exclusivamente en el tercer trimestre.
Una comparación aleatorizada en 46 embarazadas estudió SAMe oral 500 mg dos veces al día frente a ácido ursodesoxicólico 300 mg dos veces al día hasta el parto. El prurito disminuyó en ambos grupos, pero los ácidos biliares y varios indicadores bioquímicos descendieron más con ácido ursodesoxicólico. Este pequeño estudio no demuestra prevención de desenlaces fetales adversos mediante SAMe. Mejorar ALT o bienestar tampoco elimina el riesgo obstétrico.
La interpretación práctica exige distinguir fundamento molecular, respuesta bioquímica y desenlace del embarazo. Ácidos biliares, presentación clínica y valoración obstétrica responden a preguntas distintas. El prurito gestacional necesita evaluación médica; los estudios no respaldan reemplazar por cuenta propia el manejo por un «citoprotector». Una pauta universal impresa de infusiones, sin vincularla a producto, indicación y decisión obstétrica, resulta improcedente.
Sulfatación de matriz y artrosis
Las cadenas de glucosaminoglicanos de agrecano, cargadas negativamente, retienen agua en el cartílago y contribuyen a resistir compresión. Las sulfotransferasas usan PAPS para formar cadenas sulfatadas, incluidos condroitín sulfatos. Así se conecta el azufre con la matriz, pero restaurar cartílago exige también condrocitos viables, síntesis del soporte proteico, entorno mecánico adecuado y equilibrio de degradación.
Los estudios celulares de ademetionina examinaron propiedades de condrocitos y síntesis de componentes de matriz. No demuestran supresión clínica de todo el eje NF-κB, IL-1β, TNF-α, MMP-1/3/13 y ADAMTS-4/5. Estas moléculas importan en inflamación y catabolismo, pero no pueden presentarse sin estudios directos como dianas establecidas de SAMe en pacientes con artrosis. Menos dolor tampoco prueba menor destrucción estructural.
Un pequeño ensayo cruzado comparó SAMe 1200 mg/día y celecoxib 200 mg/día en artrosis de rodilla. Celecoxib reducía el dolor más rápido inicialmente; después se observaron resultados sintomáticos similares. Limitan la interpretación el tamaño, el posible arrastre entre periodos y la evaluación insuficiente de complicaciones raras. No establece equivalencia universal con todos los AINE ni ausencia de riesgo cardiovascular.
La revisión utilizada en el original incluía cuatro ensayos con 656 participantes, no 14 con 1462. El resultado seguía siendo incierto por la calidad de los estudios. SAMe no puede considerarse un regenerador de cartílago demostrado ni un sustituto automáticamente seguro del tratamiento estándar. Para valorar síntomas se usan dolor, función, tolerancia a carga e instrumentos acordados como EVA y WOMAC, sin sustituirlos por argumentos sobre sulfato.
Depresión: interpretación de ensayos contradictorios
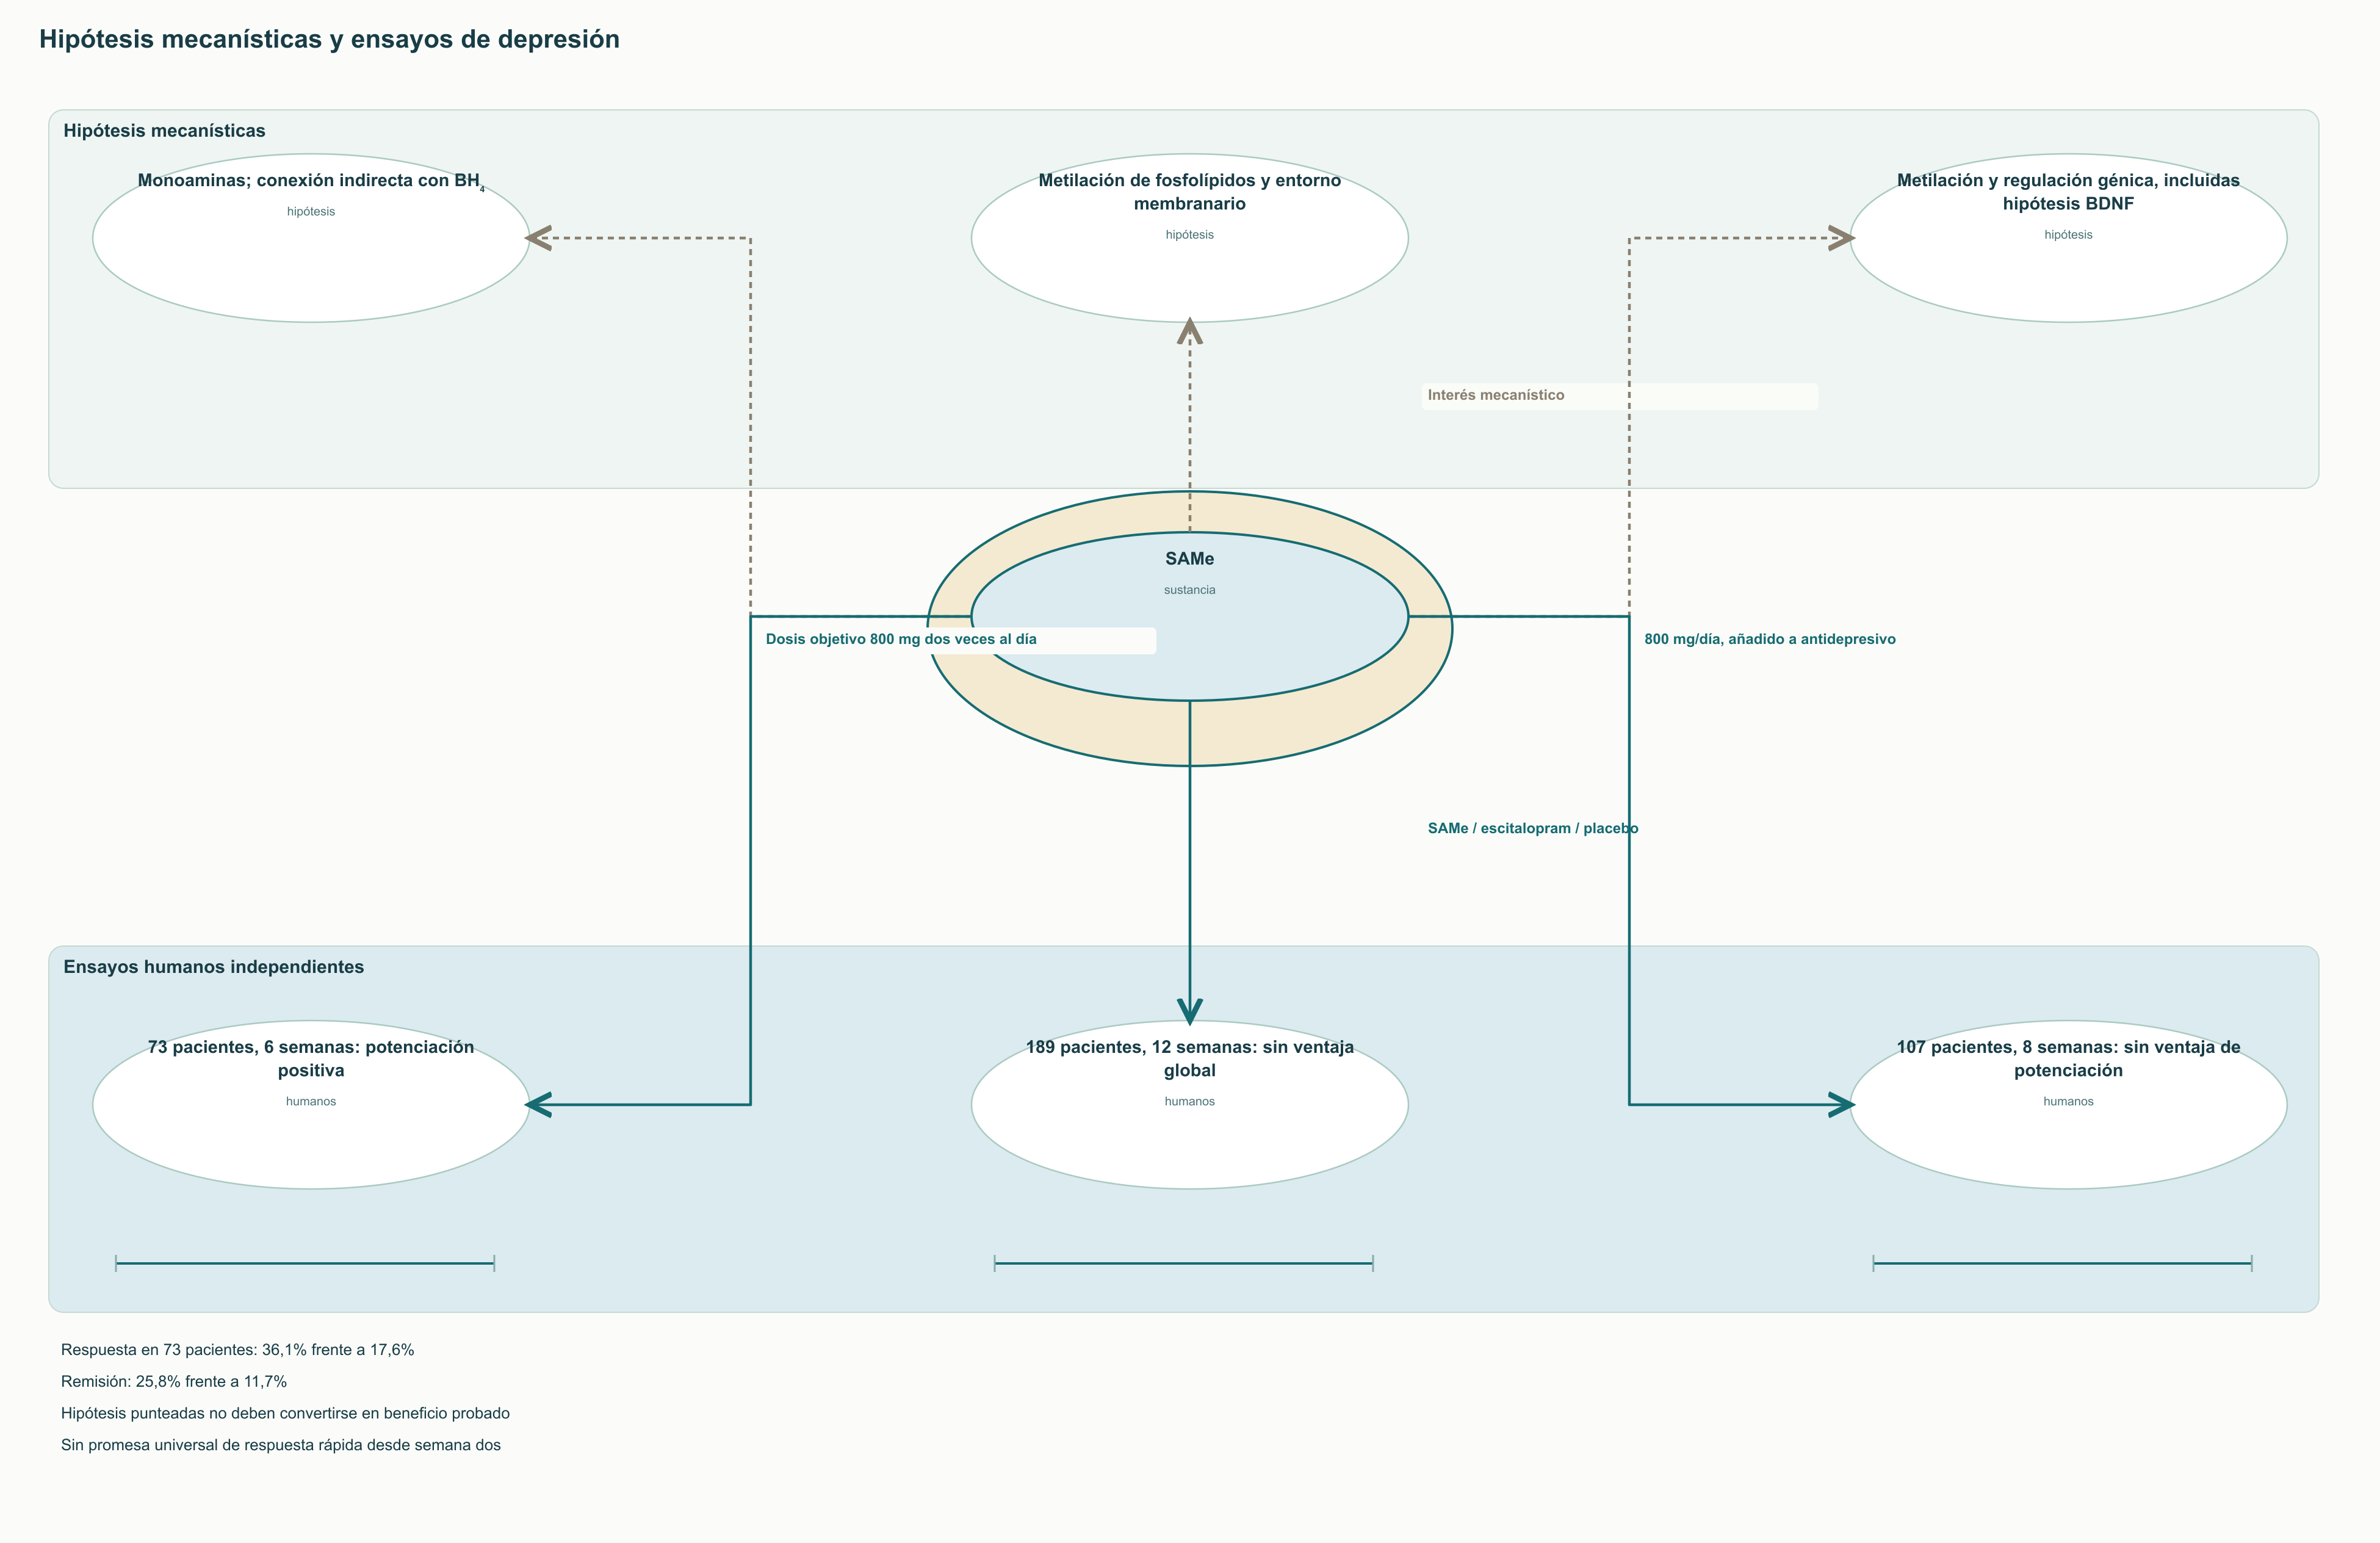
Los posibles efectos de SAMe sobre el ánimo se relacionaron con metilación, monoaminas y membranas. A veces se incluye la metilación del promotor BDNF, pero metilar no implica aumentar la expresión de la neurotrofina. Ningún mecanismo se ha establecido como eslabón obligatorio del efecto antidepresivo humano de ademetionina. La depresión es heterogénea: no hay una cadena bioquímica universal entre «falta de SAMe» y episodio clínico.
El ensayo más conocido de añadir SAMe a un inhibidor de recaptación de serotonina incluyó 73 pacientes con respuesta insuficiente. En seis semanas, con dosis objetivo de 800 mg dos veces al día, respondió el 36,1% frente al 17,6% con placebo añadido; la remisión fue del 25,8% frente al 11,7%. Es un resultado positivo de un pequeño ensayo de potenciación. No puede generalizarse, presentarse como efecto rápido probado a los pocos días ni justificar combinaciones por cuenta propia.
Otro ensayo de dos centros asignó a 189 participantes SAMe, escitalopram o placebo durante 12 semanas. Ningún tratamiento activo mostró ventaja significativa en el desenlace principal de la muestra completa. Un análisis de un centro fue más favorable para SAMe, pero no anula el resultado global. Si dos terapias no difieren y ninguna supera al placebo, afirmar equivalencia clínica demostrada es erróneo. La no inferioridad requiere diseño adecuado y margen predefinido.
Un ensayo posterior de potenciación, de ocho semanas y 107 pacientes, tampoco mostró ventaja de SAMe 800 mg/día sobre placebo en la escala principal. Las diferencias de dosis y diseño impiden llamarlo réplica exacta, pero obligan a abandonar promesas inequívocas de eficacia. El genotipo COMT y los indicadores metabólicos no fueron predictores útiles de respuesta específica; también se describió un caso con síntomas semejantes al síndrome serotoninérgico.
Pregunta clínica
Qué muestran los estudios
Qué sigue incierto
SAMe en monoterapia
Hay trabajos iniciales positivos; una comparación mayor controlada con placebo tuvo resultado principal negativo
Reproducibilidad, formulación y población óptimas
Adición a un antidepresivo
Ensayo positivo de 73 pacientes y negativo de 107
Quién se beneficia y cómo cambia el riesgo con distintas combinaciones
Rapidez
Se evaluaron cambios semanales en ensayos concretos
No hay ventaja universal de rapidez frente a ISRS
Tolerabilidad
Fue aceptable globalmente en algunos estudios
Reacciones raras, seguridad prolongada y viraje afectivo requieren evaluación propia
En la práctica, el psiquiatra aclara diagnóstico, gravedad, riesgo suicida, suficiencia del tratamiento previo y probabilidad de espectro bipolar. Si se considera SAMe, se eligen previamente desenlace y plazo, se registran medicamentos concomitantes y se vigilan sueño, ansiedad y activación. HAM-D o MADRS ayudan a seguir síntomas, pero mejorar la relación de laboratorio no sustituye la respuesta clínica. En episodios graves, las hipótesis metabólicas no deben retrasar tratamiento necesario.
Neurodegeneración: PSEN1, BACE1 y metilación de PP2A
Un estudio temprano del líquido cefalorraquídeo encontró SAMe reducida en parte de pacientes con depresión marcada y demencia. Sugiere cambios metabólicos, pero no establece si precedieron la enfermedad o fueron consecuencia. Un descenso universal del 70–80% no es un signo diagnóstico típico de Alzheimer, y el plasma no sustituye el estudio del tejido nervioso.
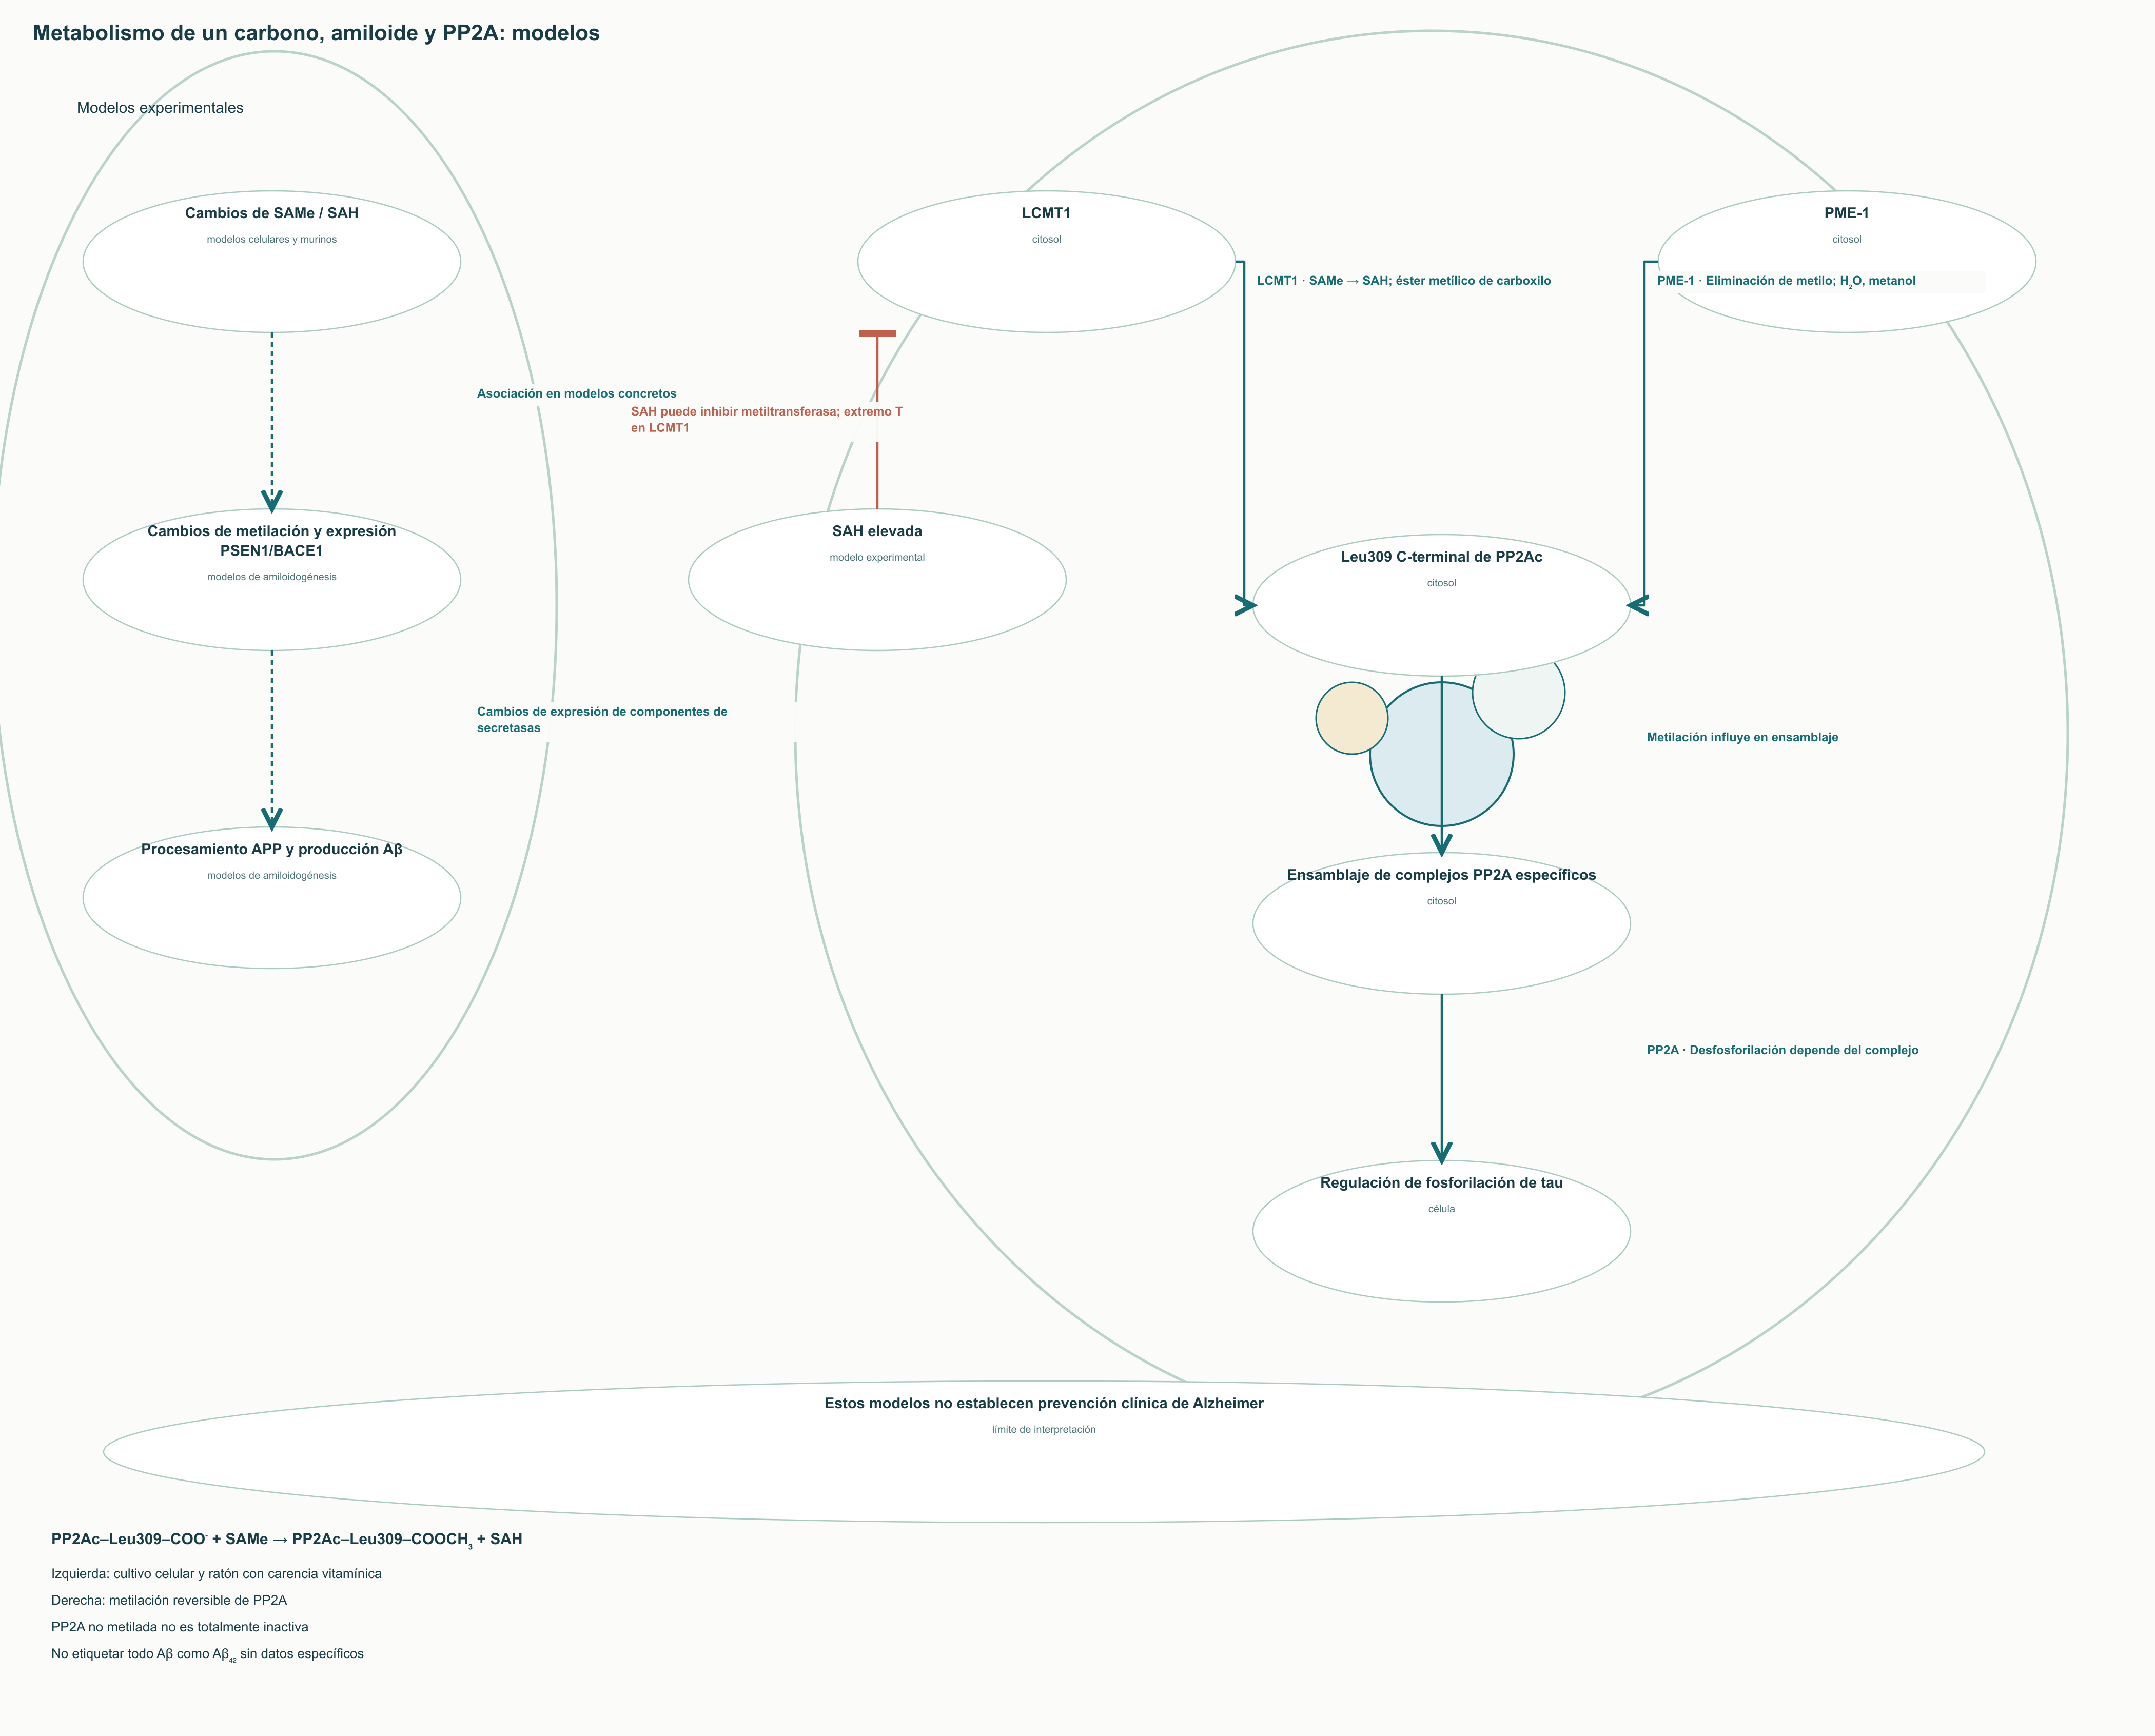
En cultivos de neuroblastoma humano, administrar SAMe se acompañó de menor expresión de PSEN1 y producción de β-amiloide. En ratones privados de vitaminas B cambiaron SAMe, SAH, expresión de PS1 y BACE y depósito amiloide. Estos sistemas permiten estudiar metabolismo de un carbono y proteólisis de APP. No demuestran que todos los promotores PSEN1 y BACE1 estén siempre «silenciados» en el cerebro humano normal ni que el fármaco restaure un único estado normal de metilación. Presenilina-1 es un componente del complejo γ-secretasa, no todo el complejo; su expresión no describe completamente la amiloidogénesis.
La otra rama trata de la proteína fosfatasa PP2A. LCMT1 transfiere un metilo de SAMe al carboxilo de Leu309 C-terminal de la subunidad catalítica, formando éster metílico y SAH. PME-1 puede eliminarlo. La modificación afecta al ensamblaje de determinados complejos con subunidades reguladoras y a la selección de sustratos, incluidos los relacionados con fosforilación de tau. Leu309 corresponde a la estructura establecida de PP2Ac, no a una posición arbitraria.
En neuroblastomas y ratones se relacionó acumulación de SAH con cambios de metilación de PP2A y fosforilación de tau y APP. Pero PP2A no metilada no carece completamente de actividad: la metilación modifica sobre todo composición y propiedades de los complejos. La secuencia «déficit de SAMe — apagado de toda PP2A — ovillos neurofibrilares inevitables» es demasiado categórica.
Estos datos explican dianas de investigación, no un protocolo preventivo de demencia. Las quejas cognitivas exigen evaluar función, autonomía cotidiana, factores vasculares y farmacológicos, sueño y causas reversibles. MoCA y MMSE se emplean en contexto clínico; los cambios de puntuación no prueban efecto sobre amiloide o tau. Los trabajos no justifican cursos preventivos de SAMe ni un objetivo de homocisteína inferior a 7–8 μmol/l para todos.
Formulación y farmacocinética
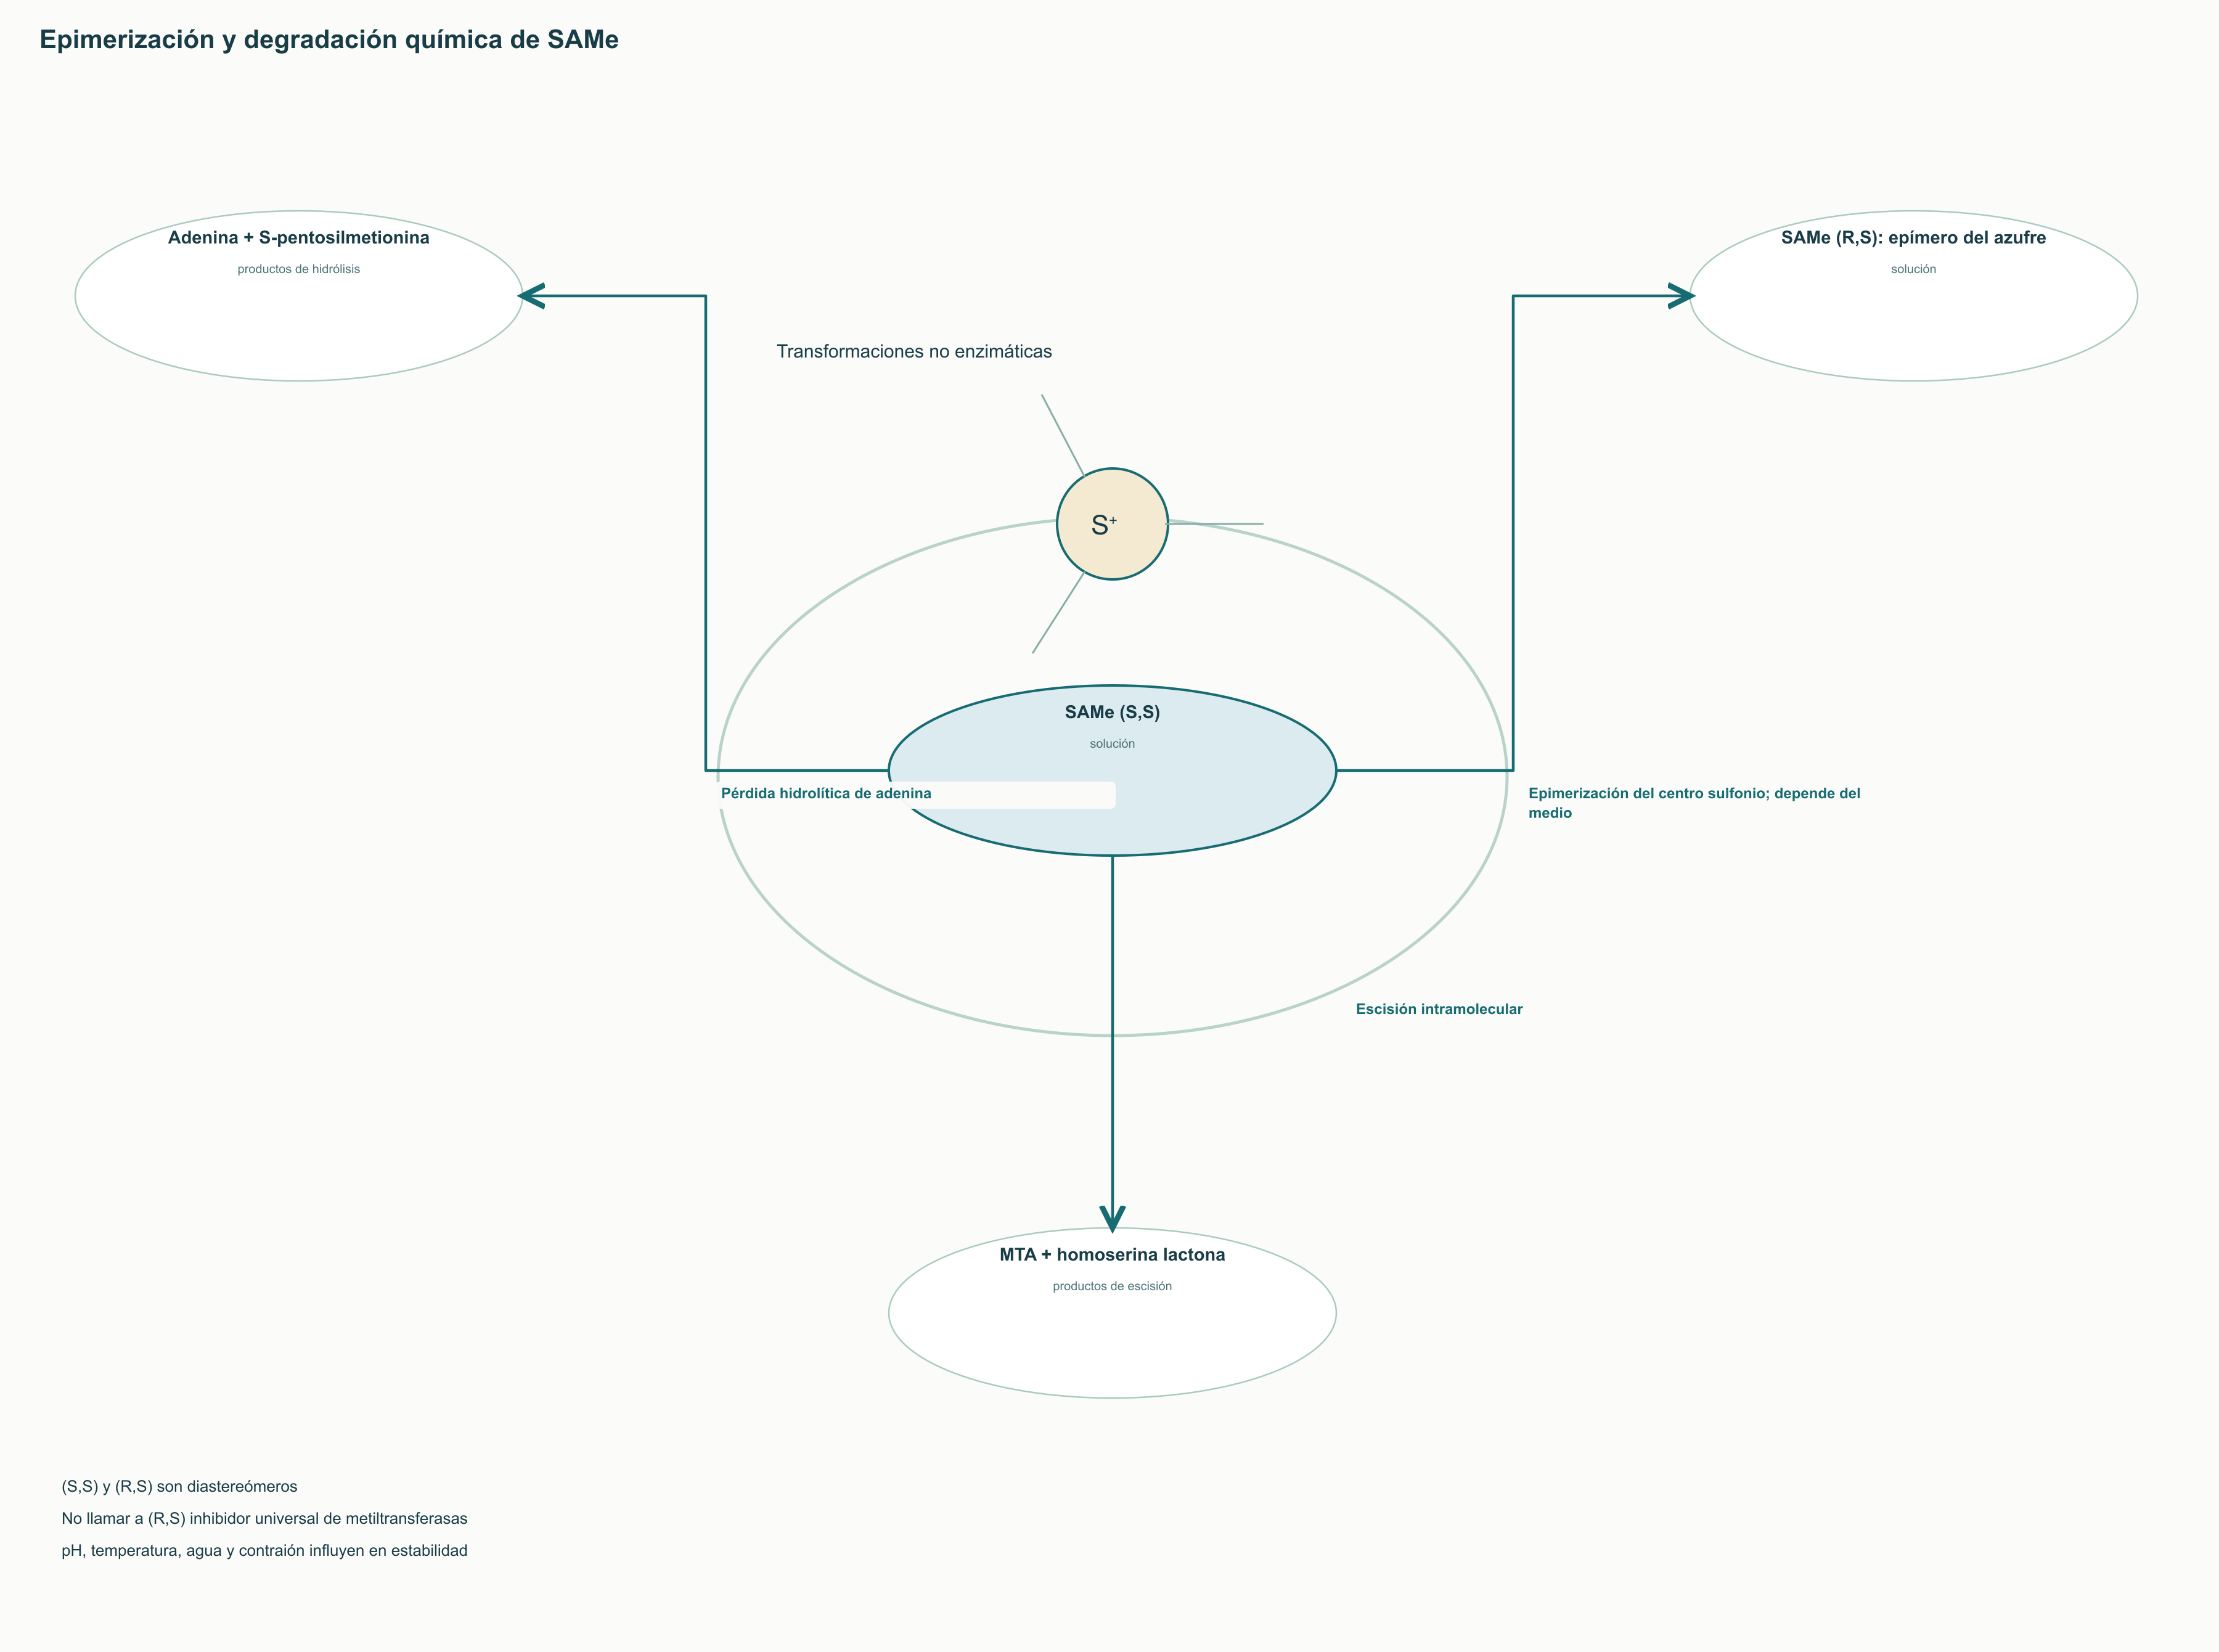
SAMe tiene dos centros estereogénicos: azufre y carbono α de metionina. La configuración fisiológicamente relevante para metiltransferasas habituales es (S,S). La epimerización del azufre produce el diastereómero (R,S), no un enantiómero especular. Es menos adecuado para metilaciones habituales, pero no debe declararse automáticamente inhibidor directo universal de todas las transmetilasas.
Además de epimerización, puede escindirse en 5′-metiltioadenosina, MTA, y homoserina lactona, o perder adenina por hidrólisis y formar S-pentosilmetionina. Las velocidades dependen de pH, temperatura y medio. Estas reacciones explican almacenamiento y control de composición, pero no significan destrucción completa con cualquier contacto con jugo gástrico.
Los medicamentos usan sales estabilizadas, como 1,4-butanodisulfonato y formas tosilato/sulfato. El nombre no garantiza conservar todo el isómero (S,S) hasta caducidad. Hay que distinguir masa de sal y cantidad declarada de ademetionina activa, y considerar envase, humedad y datos del producto. Comparar dosis por la masa de toda la sal es incorrecto.
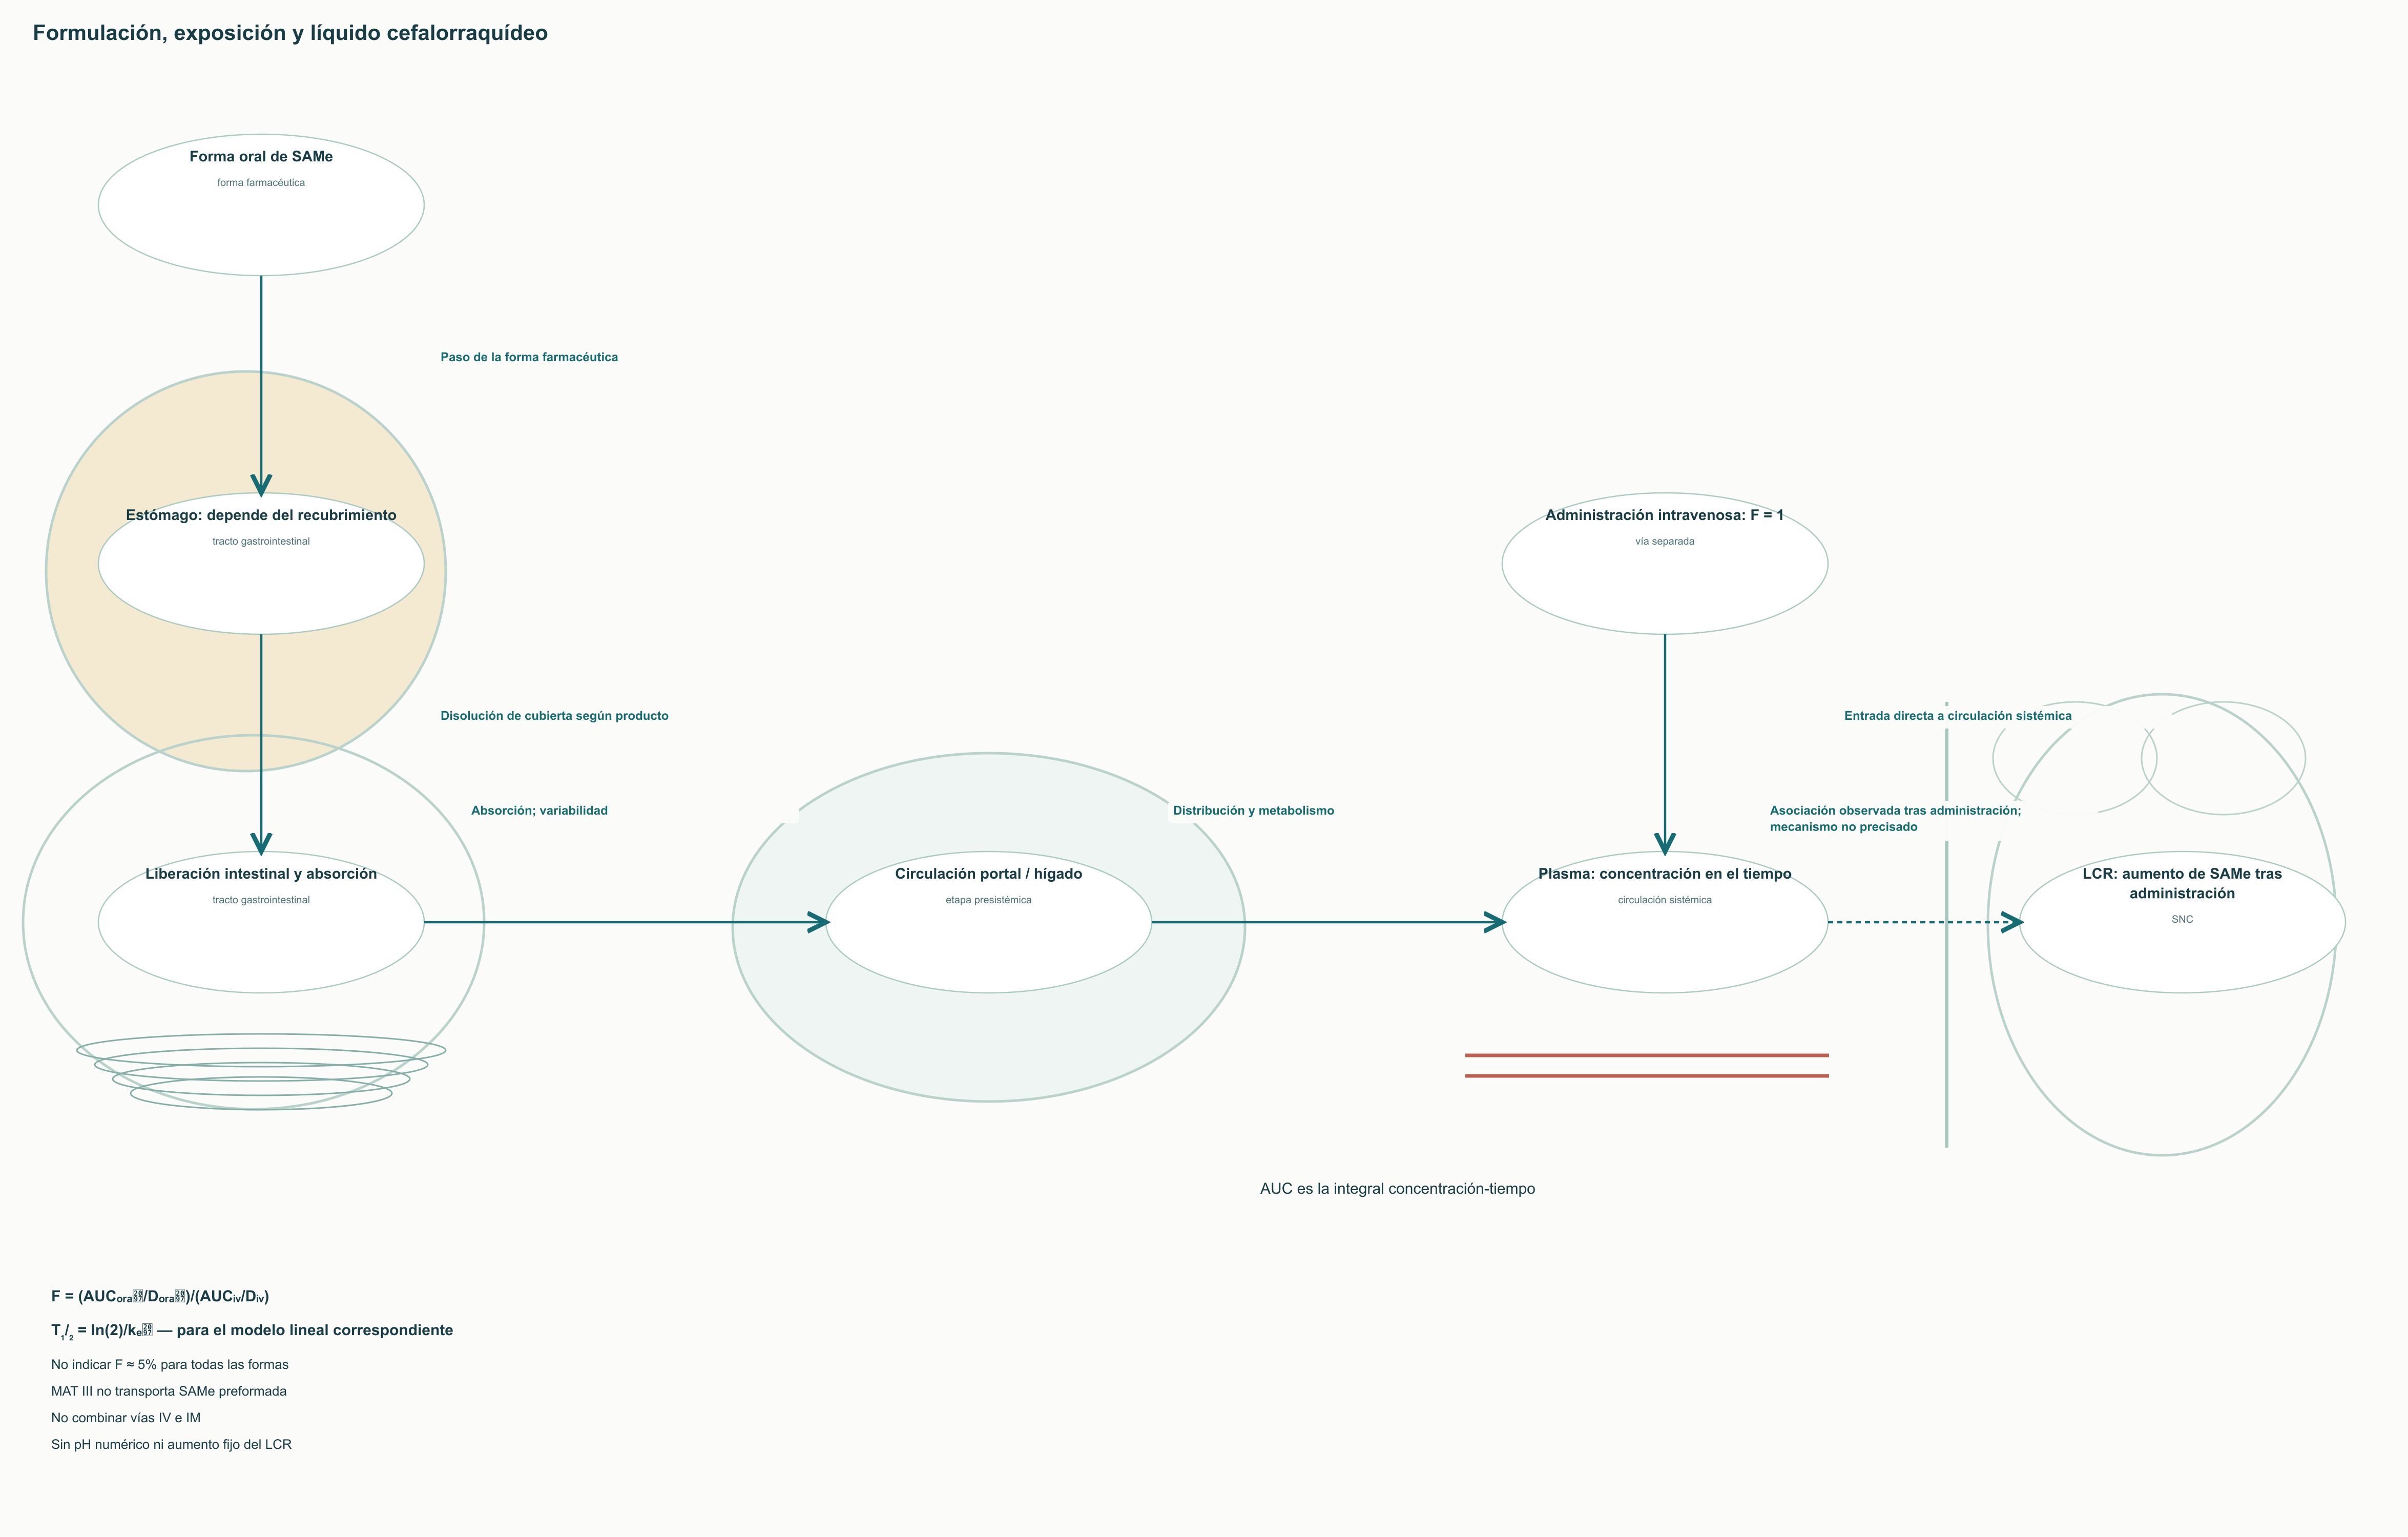
Las formas gastrorresistentes cambian lugar y tiempo de liberación. Normalmente no se rompe ni mastica el recubrimiento si contradice las instrucciones. No implica que todas las tecnologías orales deban tener idéntica cubierta con umbral pH 6. Horario respecto a comidas y conservación también pertenecen a la formulación concreta, no a la molécula en general.
Parámetro
Qué puede afirmarse
Uso práctico
Biodisponibilidad F
La vía intravenosa da F = 1 por definición; la exposición oral es menor y depende de formulación
No reunir vías intravenosa e intramuscular en un intervalo universal
Tₘₐₓ
El tiempo al máximo depende de vía, cubierta y absorción
No extrapolar un pequeño estudio a todos los productos
T₁/₂
Describe descenso de concentración en una fase farmacocinética
No equivale a duración del efecto clínico
Plasma y líquido cefalorraquídeo
Se observaron aumentos de SAMe en ambos tras administrarla
El aumento cefalorraquídeo no establece transporte preciso ni eficacia
Dosis repetidas
Los estudios de sales describen pautas concretas
Se necesitan datos de formulación, población y tratamientos concomitantes
La biodisponibilidad absoluta se expresa como F = (AUCₒᵣₐₗ/Dₒᵣₐₗ)/(AUCᵢᵥ/Dᵢᵥ). AUC es área bajo la curva concentración-tiempo y D la dosis administrada; se requieren condiciones compatibles y considerar el nivel endógeno. En un modelo monocompartimental con eliminación lineal, T₁/₂ = ln(2)/kₑₗ, donde kₑₗ es constante de eliminación. Las fórmulas explican indicadores, pero no fijan para SAMe F universal de aproximadamente 5% ni semivida de hora y media. Tampoco el aumento cefalorraquídeo permite prometer 40–80% para todos.
Seguridad y decisiones clínicas de prescripción
El origen endógeno no excluye efectos adversos al administrar SAMe. Puede haber molestias digestivas, insomnio, ansiedad y agitación. Merece especial atención el viraje afectivo: se comunicaron hipomanía y manía ya en estudios tempranos. Antes de considerar ademetionina se investigan ánimo elevado, menor necesidad de sueño, actividad inhabitual, antecedentes familiares y respuestas a antidepresivos.
Un estabilizador del ánimo no hace automáticamente segura SAMe ni la convierte en tratamiento probado de depresión bipolar. Ante sospecha de espectro bipolar decide el psiquiatra; no procede una pauta de monoterapia de un artículo público. Mayor agitación, insomnio y cambio conductual requieren reevaluación, no seguir aumentando la dosis.
Las combinaciones serotoninérgicas necesitan conciliación de medicamentos. Los ensayos sí añadieron SAMe a inhibidores de recaptación; afirmar toxicidad inevitable de cualquiera de esas combinaciones es incorrecto. Pero no prueban seguridad de mezclas arbitrarias con IMAO, varios antidepresivos, 5-HTP, tramadol, dextrometorfano o hipérico. Clonus, hiperreflexia, temblor, agitación e hipertermia necesitan valoración urgente; el carácter «natural» no determina el riesgo.
Formar homocisteína en el ciclo no significa elevación obligatoria en sangre tras SAMe. Un estudio controlado con placebo en voluntarios sanos y un análisis bioquímico parcial de un ensayo psiquiátrico no encontraron tal aumento necesario. No garantiza seguridad universal, pero elimina la justificación para recetar a todos dosis preventivas altas de B₁₂, folato, B₆ y betaína.
Los cofactores se usan ante déficit confirmado u otra indicación. Si se sospecha carencia de B₁₂, no basta con folato: hay que esclarecer la causa. El exceso crónico de B₆ puede dañar nervios periféricos; no debe añadirse 20–50 mg/día solo como supuesto «apoyo a la metilación». Betaína actúa principalmente por BHMT hepática y renal, no protege universalmente el cerebro frente a SAH.
Situación
Qué evalúa el profesional
Desenlace relevante
Respuesta incompleta en depresión
Diagnóstico, espectro bipolar, suficiencia del tratamiento, interacciones y preferencias
Síntomas, función, seguridad; HAM-D/MADRS junto a entrevista
Quejas cognitivas
Causas reversibles, sueño, nutrición, medicamentos y estado neurológico
Función real y evolución, sin prometer prevenir patología amiloide
Colestasis gestacional
Causa del prurito, ácidos biliares, riesgo obstétrico y plan
Síntomas maternos y resultados del embarazo; ALT no sustituye riesgo
Artrosis
Diagnóstico, carga, dolor, limitaciones y comorbilidades
Dolor y función; no hay prueba de regeneración
Posible déficit vitamínico
Alimentación, malabsorción, signos y análisis necesarios
Corregir el trastorno identificado, no tratar un índice investigador
Esta secuencia sustituye un protocolo universal de «inducción» y «mantenimiento» para enfermedades heterogéneas. Las dosis de ensayos ayudan a interpretar aplicabilidad, pero no justifican inicio obligatorio con inyecciones, meses de tratamiento ni infusión en un volumen fijo. En una indicación autorizada, formulación, dosis y vía siguen instrucciones y decisión clínica. Si hay activación, se discuten horario y retirada, no un último uso obligatorio antes de las 14:00 para todos.
SAMe sigue siendo un participante metabólico importante que conecta metilos, lípidos membranarios, reacciones concretas de monoaminas y transferencia de azufre. Para el profesional, su valor está en interpretar con precisión mecanismos e investigaciones. Permite reconocer causas de alteraciones y formular preguntas clínicas, pero no sustituir evidencia de eficacia por la belleza de una ruta bioquímica.
Preguntas frecuentes
¿SAMe/SAH permite diagnosticar depresión o «bloqueo de metilación»?
No. Es un indicador investigador dependiente del medio y del método; no hay umbrales universales para esos diagnósticos. Deben evaluarse el estado clínico y las causas concretas de alteraciones metabólicas.
¿SAMe aumenta directamente dopamina y serotonina?
Participa directamente en reacciones dependientes de PNMT, COMT y ASMT, pero no es sustrato para formar dopamina desde L-DOPA ni serotonina desde 5-HTP. El resultado sobre señalización no puede predecirse con una sola enzima.
¿Está demostrada la prevención de Alzheimer con ademetionina?
Los modelos celulares y murinos conectan metabolismo de un carbono, amiloide y PP2A/tau. No justifican un curso preventivo clínico de SAMe.
¿Todos quienes toman SAMe necesitan vitaminas B y betaína?
No. Se indican cofactores ante déficit identificado u otra indicación. El ciclo de metionina no demuestra aumento obligatorio de homocisteína tras el fármaco; exceso de B₆ puede perjudicar.
¿Puedo añadir SAMe a un antidepresivo por mi cuenta?
Las combinaciones investigadas no son instrucciones de automedicación. Se necesitan conciliación farmacológica, valoración del espectro bipolar y vigilancia de activación y síntomas serotoninérgicos.