
NR va NMN: NAD⁺ yo‘li, hujayraviy transport va klinik chegaralar
Nikotinamid ribozid va NMN taqqoslanadi: NAMPT, CD73 va NRK1 dan qon va mushakkacha; SLC12A8 bahsi, izotop farmakokinetikasi va klinik sinovlarning aralash natijalari.
Nikotinamid ribozid va NMN taqqoslanadi: NAMPT, CD73 va NRK1 dan qon va mushakkacha; SLC12A8 bahsi, izotop farmakokinetikasi va klinik sinovlarning aralash natijalari.
«NAD⁺ ni qaysi modda yaxshiroq oshiradi — nikotinamid ribozid (NR)mi yoki nikotinamid mononukleotid (NMN)mi?» degan savolga tajribalar bir necha xil javob beradi. Butun qondagi NAD⁺ ko‘payishi, belgilangan prekursorning jigar havzasiga qo‘shilishi va mushak funksiyasining o‘zgarishi turli jarayonlarni o‘lchaydi. Ularning hech biri modda muayyan hujayraga o‘zgarmagan holda yetib borganini, erkin yadro yoki mitoxondriya NAD⁺ ni tiklaganini va inson uchun muhim natijani yaxshilaganini o‘zi alohida ko‘rsatmaydi. Ikki molekulani taqqoslash uchun kimyoviy shakl, ichak bo‘shlig‘i, plazma, hujayradan tashqari fermentlar, membrana va hujayra ichidagi foydalanish ketma-ket ko‘rib chiqilishi kerak; manba matnidagi qat’iy xulosalar ko‘pincha aynan shu o‘tishlarda dalillardan oldinga ketadi.
Nikotinamid adenin dinukleotidning oksidlangan shakli glikoliz, piruvat oksidlanishi, trikarboksilik kislotalar sikli va β-oksidlanishda gidrid qabul qiladi, NADH esa nafas olish zanjiriga qaytaruvchi ekvivalentlarni beradi. Redoks siklida kofermentning oksidlanish-qaytarilish darajasi o‘zgaradi, biroq piridin skeleti parchalanmaydi: . Bu sikl katabolizm va ATP sintezini qo‘llab-quvvatlaydi. Bundan alohida, NAD⁺ sirtuinlar orqali oqsil deatsillanishida, PARP vositasidagi ADP-ribozillanishda hamda CD38/CD157 gidrolizida substrat sifatida sarflanadi. Bunda nikotinamid (NAM) ajralib chiqadi; u sintez yo‘liga qaytishi yoki katabolizmga uchrashi mumkin. Demak, NAD⁺ konsentratsiyasini faqat prekursor qabul qilish emas, sintez va sarf, NADH ning qayta oksidlanishi, kompartmentlararo almashinuv hamda namunadagi hujayra tarkibi birgalikda belgilaydi.
O‘lchangan «umumiy NAD⁺» qaytar dehidrogenaza reaksiyalarining yo‘nalishini belgilovchi erkin nisbatidan farq qiladi. Sitozol va mitoxondriya matriksining redoks potensiallari turlicha: sitozol nisbatan oksidlangan bo‘lib qoladi, matriks dehidrogenazalari va nafas olish zanjiri esa boshqa sharoitni yuzaga keltiradi. NAD⁺ va NADH ni bir tekis aralashgan yagona havza sifatida tasavvur qilmaslik kerak. Yadro, sitozol va matriks havzalari metabolit oqimi va transport bilan bog‘langan, ammo fermentlar faqat mahalliy mavjud substratga duch keladi. Indikator muvozanatlari yoki fluoresans sensorlaridan olingan erkin konsentratsiya baholari usul va to‘qimaga bog‘liq; bitta o‘zgarmas nisbatni barcha hujayralarga tatbiq qilib bo‘lmaydi. Mitoxondriya havzasining barqarorligini faqat NMNAT3 mavjudligidan chiqarib bo‘lmaydi: sutemizuvchilarda ichki membrana orqali NAD⁺ tashilishi tasvirlangan, mahalliy sintez va transportning hissasi esa modelga bog‘liq.
Sirtuinlar NAD⁺ ga muhtoj, ammo reaksiyasi va joylashuvi jihatidan bir xil emas. SIRT1, SIRT6 va SIRT7 asosan yadroda; SIRT2 ko‘proq sitozolda; SIRT3, SIRT4 va SIRT5 mitoxondriyalar bilan bog‘liq. NAD⁺ ga bog‘liq deatsetillanish mahsulotlari — deatsetillangan oqsil, NAM va O-atsetil-ADP-riboza. SIRT4/5 oqsilning boshqa modifikatsiyalarini ham afzal ko‘radi; shuning uchun ularni yagona «deatsetillanish tezligi»ga qisqartirib bo‘lmaydi. PARP1/2 DNK shikastlanishiga javob berib, XRCC1 kabi ta’mirlash komplekslarini jalb qiluvchi poli(ADP-riboza) zanjirlarini hosil qiladi. PARP1 haddan tashqari faollashganda NAD⁺ sarfi energetik shikastlanishga hissa qo‘shishi mumkin, biroq fiziologik DNK ta’mirlanishi patologik «oqib ketish» emas. CD38 katalitik sohasi asosan hujayradan tashqariga qaragan bo‘lsa-da, ichki topologiyalari ham bor; u NAD⁺ ni NAM va ADP-ribozaga parchalaydi, siklik ADP-riboza esa bu yo‘lni kalsiy signalizatsiyasiga bog‘laydi. Qarindosh CD157 faolligi va tarqalishi jihatidan CD38 bilan teng emas.
Sichqon modellarida yosh o‘tishi bilan CD38-musbat yallig‘lanish hujayralarining ortishi to‘qima NAD⁺ kamayishi bilan bog‘langan; Cd38 ni o‘chirish bu siljishni yumshatgan. SIRT1–HIF-1α–yadro va mitoxondriya muvofiqligi buzilishi modeli ham tajriba tizimlarida sababiy zanjirni ko‘rsatadi. Odamlarda yosh bilan NAD⁺ o‘zgarishi to‘qima, ekstraksiya usuli va hujayra tarkibiga qarab farq qiladi. Shuning uchun «ma’lum foizga universal pasayish» va undan keyingi muqarrar «mitoxondrial qulash» tasdiqlangan klinik qonun emas. NAD⁺ kamayishi yallig‘lanish yoki boshqa kasallik oqibati bo‘lishi, shu bilan birga uning mexanizmida qatnashishi mumkin; sabab yo‘nalishini aniqlash uchun intervensiya ma’lumotlari kerak.
De novo yo‘li L-triptofandan boshlanadi: TDO yoki IDO uni N-formilkinureninninga aylantiradi, so‘ng kinurenin va 3-gidroksiantranilat orqali HAAO beqaror ACMS hosil qiladi. ACMSD bu oraliq mahsulotni boshqa tomonga burib, uning xinolinatga o‘z-o‘zidan sikllanishi bilan raqobatlashadi. QPRT ga yetadigan substrat miqdorini bitta ma’lumotnomadagi emas, oqim va mahalliy sharoit belgilaydi. QPRT fosforibozilpirofosfat (PRPP) dan foydalanib NAMN hosil qiladi. Keyin NMNAT NAMN ni NAAD ga adenillaydi, NADSYN1 esa amid azoti donori sifatida glutamin bilan NAD⁺ sintezini yakunlaydi. Bu yo‘l uchun triptofan, PRPP va ATP manbalari kerak; prekursor dozasi barcha to‘qimalarda ushbu resurslar mavjud degani emas. IDO ning yallig‘lanishdagi ishtiroki NAD biosintezini kinurenin yo‘liga bog‘laydi, ammo IDO oshishi NAD⁺ ko‘payishini kafolatlamaydi: oraliq moddalarni boshqa tarmoqlar ham sarflaydi.
Nikotinik kislota (NA) NAPRT orqali kiradi: , undan keyin NMNAT va NADSYN1 qatnashadi. Bu Preiss–Handler yo‘li; triptofandan bo‘ladigan barcha sintezni shunday atash noto‘g‘ri. Hujayradagi NAPRT ekspressiyasi farqlanadi, mikrobial NAM deamidlanishi esa bu tarmoqqa qo‘shimcha substrat berishi mumkin. Niasin shakllarining klinik farqlari va cheklovlari B₃ vitamini haqidagi materialda ko‘rib chiqilgan. NA ning farmakologik dozalari HCAR2 ni faollashtirib, prostaglandin vositasidagi teri qizarishini keltirib chiqarishi mumkin; NR yoki NMN dan keyin bunday qizarish bo‘lmasligi ko‘tarimlilikni tavsiflaydi, lekin qarish yoki to‘qimaga yetib borish haqida hech narsa isbotlamaydi.
Qayta foydalanish yo‘lida NAMPT NAM va PRPP ni birlashtirib NMN hosil qiladi: . So‘ng NMNAT ATP dan foydalanadi: . NAMPT muayyan hujayra holatida boshqariladigan bosqich bo‘lishi mumkin, biroq u har doim yagona «tor bo‘g‘in» emas: NAM va PRPP konsentratsiyasi, ATP mavjudligi, qayta aloqa hamda NMNAT faolligi oqimni o‘zgartiradi. Fermentologiyada tasvirlangan NAMPT gistidin qoldig‘ining fosforlanishi kataliz uchun muhim; bitta o‘lchangan tirik to‘qimada ferment doimo to‘liq to‘yinganini bildirmaydi. Hujayradan tashqari NAMPT sekretsiya qilinadigan oqsil va ehtimoliy boshqaruvchi sifatida ham muhokama qilinadi, ammo substrat va kompartmenti boshqa bo‘lgani uchun uning vazifalarini hujayra ichidagi reaksiyaga avtomatik tenglashtirib bo‘lmaydi.
NMNAT1 asosan yadroda joylashadi; NMNAT2 sitozol, Golji apparati va akson transporti bilan bog‘liq; NMNAT3 mitoxondrial va ayrim to‘qimaga xos havzalar bilan aloqador. Akson shikastlangach, qisqa umr ko‘ruvchi NMNAT2 kamayib, NMN to‘planishi va NAD⁺ pasayishiga imkon beradi; metabolitlar nisbatining o‘zgarishi SARM1 faollashuvida qatnashadi, uning NADaza faolligi esa akson degeneratsiyasini tezlashtiradi. Bu og‘iz orqali NR qabul qilish odamlarda bunday degeneratsiyani oldini oladi degani emas. NMNAT1 ning yadro iste’molchilariga yaqin joylashuvi ham yangi hosil bo‘lgan har bir NAD⁺ molekulasi PARP1 yoki SIRT1 ga bevosita «yo‘naltirilishini» isbotlamaydi. Kompartmentlar xaritasi butun qon markeridagi bir xil o‘zgarish nima uchun turli mahalliy javoblar bilan birga kechishini tushunishga yordam beradi.
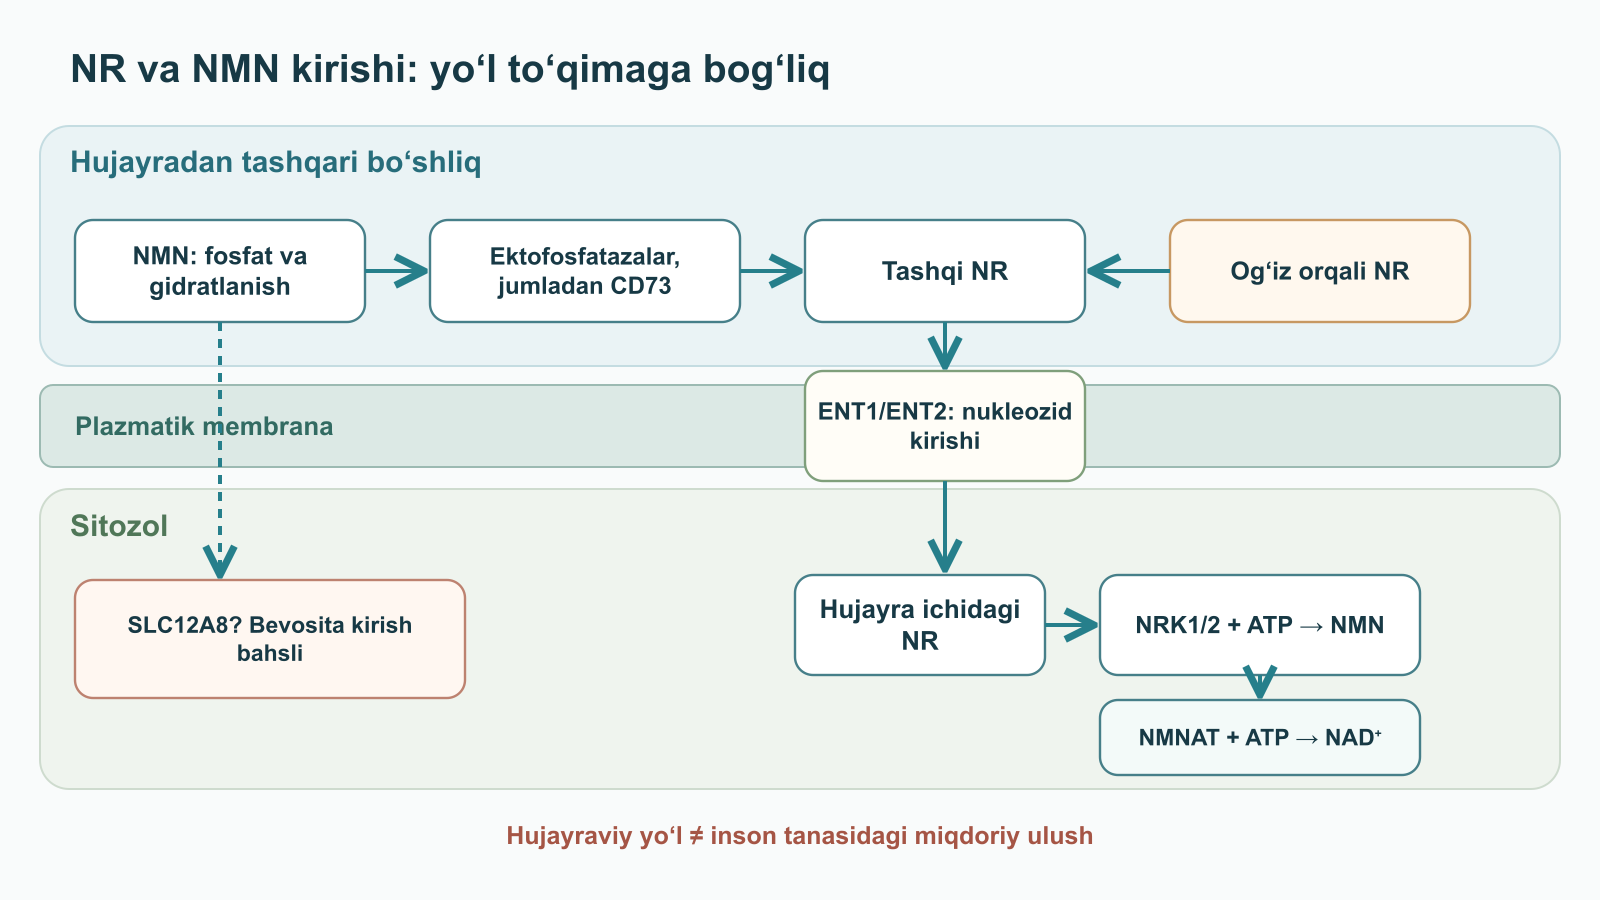
NR — piridiniy ribonukleozid, NMN esa qo‘shimcha 5′-fosfat tutadi. Shu bois NR ni qat’iy «elektroneytral», NMN ni universal ikki zaryadli anion deb ta’riflash kimyoviy jihatdan noto‘g‘ri: ionlanish holati piridiniy markazi va fosfatni hisobga oladi, tuzlar tarkibida esa qarshi ion bo‘ladi. Fosfat gidratlanishni va lipid ikki qavatdan passiv o‘tishning energetik qiymatini oshiradi. Born tenglamasi elektrostatikaning hissasini ko‘rsatadi, ammo oqsillar, o‘zgaruvchan konformatsiyalar va mumkin bo‘lgan endotsitozga ega haqiqiy membrananing o‘tkazuvchanligini belgilamaydi. NMN passiv o‘tishining pastligi «butun NMN molekulasi hech qachon hujayraga kira olmaydi» degan xulosa bilan teng emas.
Yaxshi o‘rganilgan yo‘llardan biri hujayradan tashqarida boshlanadi: ekto-5′-nukleotidazalar NMN dan fosfatni olib tashlaydi, hosil bo‘lgan NR plazmatik membranadan o‘tadi, hujayra ichidagi NRK esa uni yana fosforlab NMN ga aylantiradi. Reaksiyalarni va deb yozish mumkin. CD73/NT5E birinchi qadam uchun nomzod: u GPI bilan tashqi membranaga birikkan ferment, AMP esa uning yaxshi ma’lum substratidir. Ratajczakning birlamchi gepatotsitlar va hujayra liniyalaridagi tajribalarida izotop belgilash va NRK1 ni o‘chirish NR ning hujayra tashqarisida hosil bo‘lish sxemasini qo‘llab-quvvatlagan. Biroq muayyan konsentratsiya, ferment profili va inkubatsiya vaqtidagi alohida natija NMN kirishining yagona universal yo‘lini isbotlamaydi yoki CD73 ulushini barcha inson to‘qimalari uchun belgilamaydi. Turli ektofosfatazalar va zardob fermentlarining vazifalari ustma-ust kelishi mumkin; membranagacha bo‘lgan gidrolizni hujayra ichidagi qayta ishlanishdan ajratish uchun fosfat va piridin skeletidagi belgini kuzatish kerak, hujayradagi jami NAD⁺ ni o‘lchash kifoya emas.
NR transportida nukleozid tashuvchilar, xususan ENT1/SLC29A1 va ENT2/SLC29A2 qatnashishi tasvirlangan; transport va uning farmakologik to‘silishi hujayra liniyasi hamda ingibitor turiga qarab farq qiladi. Muvozanatlashtiruvchi transport hujayra ichida NR fosforlanishi saqlab turadigan gradient bo‘ylab kechadi. Mushakdagi ENT2 va endoteliydagi ENT1 ekspressiyasi bu oqsillarning biologik ahamiyatini ko‘rsatadi, ammo umumiy ekspressiya profilidan yagona to‘qima transport tezligini chiqarib bo‘lmaydi. NR tashishi bevosita ko‘rsatilmaguncha ENT4/PMAT ni isbotlangan tashuvchilar ro‘yxatiga kiritmaslik kerak; boshqa substratlarni kislotali pH da tashish xususiyati bunday dalil bo‘la olmaydi.
NRK1 (NMRK1) keng ifodalanadi va tashqaridan berilgan NR ga hujayra javobida muhim; NRK2 (NMRK2) ko‘ndalang-targ‘il mushakda ayniqsa ahamiyatli, hayvon modellarida shikastdan keyin faollashishi mumkin. Ikkalasi ham ATP ishlatadi, keyin hosil bo‘lgan NMN ni NMNAT1–3 adenillaydi. NRK1 va NRK2 tarqalishidagi farqni insonlarda intervensiya natijalarisiz kardiomiopatiya uchun klinik «qutqaruv terapiyasi» deb ko‘rsatib bo‘lmaydi. NRK1, NRK2 yoki CD73 uchun jadvaldagi qiymatlarini qabuldan keyingi konsentratsiya bilan solishtirish, mahalliy erkin substrat, ekspressiya, , raqobatchilar va kompartment bo‘yicha taqsimlanish noma’lum bo‘lsa, qaysi yo‘l ustunligini deyarli anglatmaydi.
SLC12A8 bo‘yicha bahsni ikki tomonni ham inobatga olib bayon qilish kerak. Grozio va hamkasblari sichqon ichak modellarida natriyga bog‘liq NMN yutilishi va Slc12a8 ga ta’sir qilinganda javob o‘zgarishini xabar qilgan. Schmidt va Brenner ma’lumotlar talqiniga hamda SLC12 oilasi oqsilini NMN ga maxsus tashuvchi deb hisoblash asosiga e’tiroz bildirgan; boshqa modellardagi izotop tajribalari oldindan qayta ishlanishning sezilarli hissasini topgan. Tanqidiy izohning o‘zi har qanday to‘g‘ridan-to‘g‘ri transport imkonsizligini mustaqil isbotlamaydi, xuddi bitta ijobiy tajriba SLC12A8 inson ichagida ustunligini isbotlamagani kabi. Qonda belgi paydo bo‘lishi, doza ortidan NAD⁺ o‘zgarishi va Slc12a8 ekspressiyasi o‘zgarishi ham butun NMN muayyan membranadan o‘tganining dalili bilan teng emas. Klinik shakl tanlash uchun bu masalaning miqdoriy javobi odamlarda hali aniqlanmagan.
Og‘iz orqali qabul qilingan molekula ichak bo‘shlig‘i, cho‘tkasimon chegara fermentlari, mikrob hamjamiyati, enterotsit va jigardagi birinchi o‘tish bosqichidan o‘tadi. NR NAM gacha parchalanishi mumkin, NMN esa avval NR gacha defosforlanishi ehtimol; taqdiri kiritish yo‘li va mikrob muhitiga bog‘liq. Liu va hamkasblarining izotop tajribalarida og‘iz orqali berilgan NR va NMN jigar havzasini ko‘p jihatdan NAM orqali to‘ldirgan, vena ichiga yuborish esa bir nechta to‘qimaga butun shakllarning bevosita yetib borishini ham kuzatishga imkon bergan. Bu farq «umuman NR» yoki «umuman NMN» uchun yagona farmakokinetik tavsif berishni istisno qiladi. Sichqondagi natijadan insonda butun moddaning so‘rilish ulushini belgilab bo‘lmaydi yoki qabul qilingan doza albatta to‘liq NAM ga aylanadi deb aytib bo‘lmaydi.
Mikrob nikotinamidazasi PncA NAM ni nikotin kislotagacha deamidlaydi: . Keyingi NAAD ekspozitsiyasi va NAPRT yo‘li faolligi qayta ishlanishni aniqlashga yordam beradi, biroq izotop aniqligi bo‘lmagan qondagi metabolit uning atomlari avval qayerdan kelganini bildirmaydi. Mikrobiotasi o‘zgartirilgan modellarda bu yo‘lning hissasi ham o‘zgargan. Kuzatuvlarni har bir odamga umumlashtirish qiyin: mikrobiota tarkibi, ovqatlanish, tranzit vaqti va doza tegishli mikroorganizmlar faol bo‘lgan ichak qismiga yetib borgan-bormagani farq qiladi.
Darvoza tizimida jigar NAM, NA, NR va ularning mahsulotlarini qayta ishlaydi, o‘zi ham NAM chiqaradi. Shuning uchun qondagi NAD⁺ o‘zgarishi boshlang‘ich molekulaning neyron, mushak yoki miokardga to‘g‘ridan-to‘g‘ri yaxshiroq kirishidan ko‘ra jigar sintezi va almashinuvini aks ettirishi mumkin. LC–MS/MS usuli NAD⁺, NADH, NAM, NR, NMN, NAAD, metillangan mahsulotlar va izotop bilan belgilangan bo‘laklarni farqlab, namuna matritsasi va olingan vaqtni ko‘rsatsa ayniqsa axborotli bo‘ladi. Butun qon, PBMC, plazma, mushak biopsiyasi va hujayradan tashqari pufakchalar — turli tizimlar. To‘qima ma’lumoti va hujayra tarkibi nazoratisiz butun qondagi NAD⁺ o‘zgarishini mitoxondriya matriksi tiklangani deb atab bo‘lmaydi.
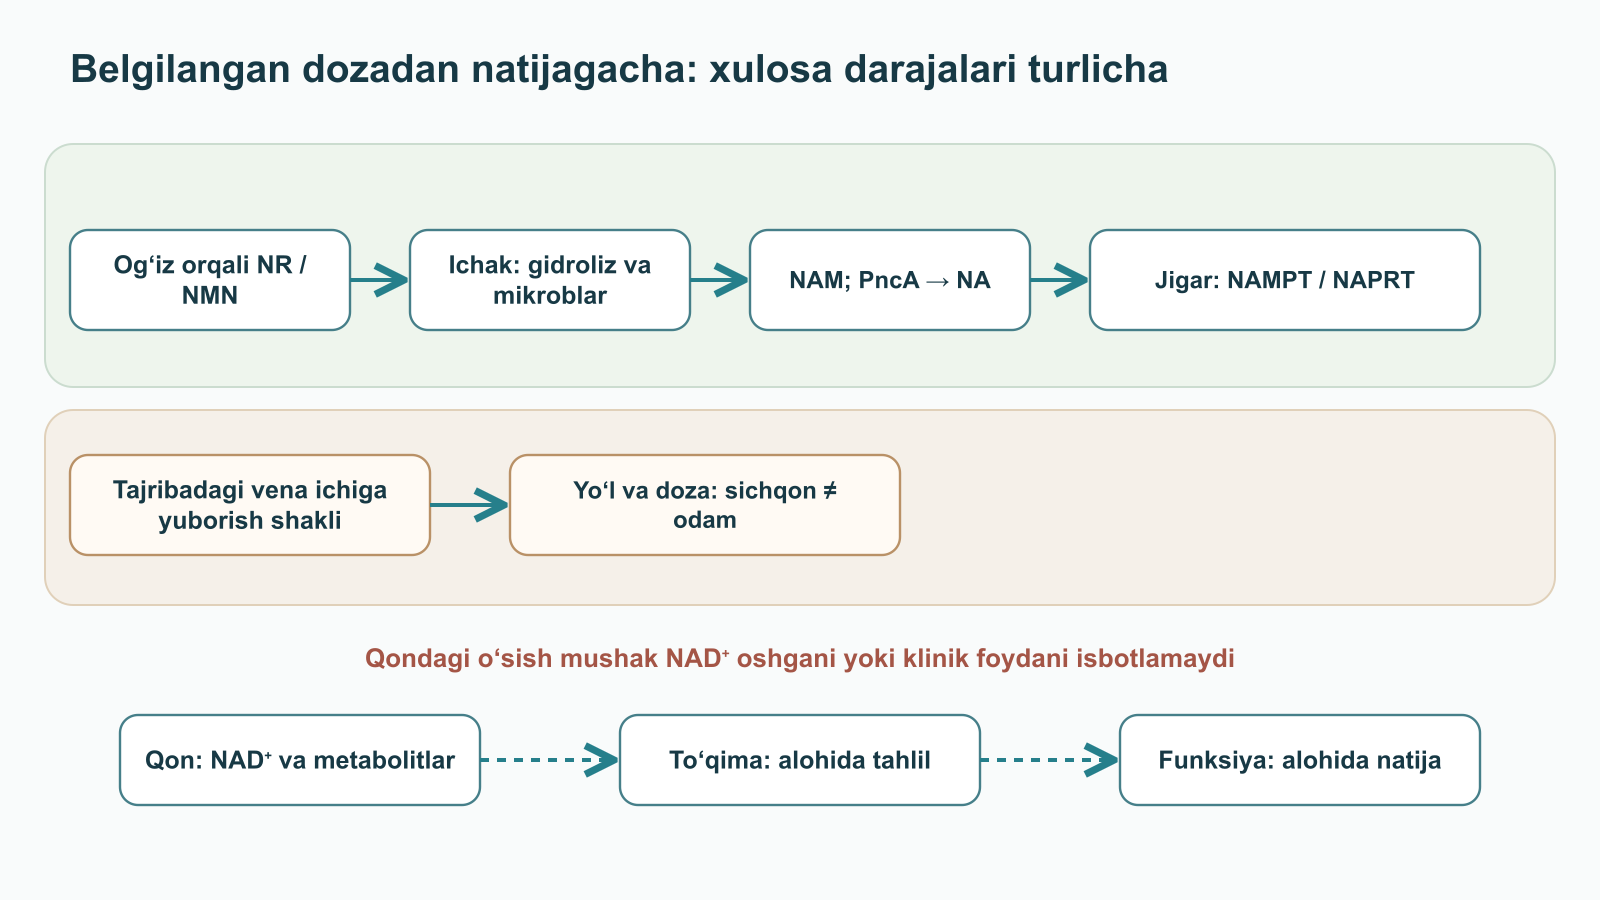
Neyronlarga yetkazilish bu chegaraga yaxshi misol. Vreones ishida NR dan so‘ng dastlabki krossover tadqiqotidagi 22 ishtirokchining plazmasida, kelib chiqishi ehtimol neyronlarga mansub pufakchalar bilan boyitilgan hujayradan tashqari pufakchalardagi NAD⁺ va oqsil markerlari o‘lchangan. Orqa miya suyuqligi ham, miya parenximasi ham olinmagan; butun NR ning qon-miya to‘sig‘idan o‘tishi ham kuzatilmagan. Natija bilvosita biomarker sifatida qiziqarli, lekin «NR ning miyaga bevosita kirishi isbotlandi» yoki «NMN kapillyarlarda albatta gidrolizlanishi kerak» degan jumlalar tajriba doirasidan tashqariga chiqadi. Endoteliydagi nukleozid tashuvchilar nomzod mexanizm beradi, uni insonlarda aniq sinash kerak.
Skelet mushagida ham vaziyat shunga o‘xshash: ENT va NRK ekspressiyasi mushak matriksida NAD⁺ ko‘payishini kafolatlamaydi va NAMPT ni ahamiyatsiz qilmaydi. Elhassan tadqiqotida NR yoshi katta erkaklarning biopsiyalaridagi NAD bilan bog‘liq metabolom va transkripsion belgilarni o‘zgartirgan, biroq bu o‘zgarishlarni ATP, chidamlilik o‘sishi yoki isbotlangan yallig‘lanishga qarshi davoga avtomatik tenglashtirib bo‘lmaydi. Mitofagiya tadqiqotlarida ham hujayra signali o‘zgarishi ish qobiliyati isbotlangan tarzda yaxshilangani degani emas.
Tajriba tizimlarida NAD⁺-ga bog‘liq SIRT1 PGC-1α va FOXO omillarini deatsetillab, mitoxondriya biogenezi, stress javobi hamda lipid almashinuvining transkripsion dasturlarini o‘zgartiradi. Soddalashtirilgan zanjir SIRT1 → PGC-1α atsetillanish holati → yadro nafas omillari bilan o‘zaro ta’sir → TFAM va nafas tizimi genlari ekspressiyasidan iborat. Jarayon atsetiltransferazalar faolligi, hujayra stressi, kislorod va substrat mavjudligiga ham bog‘liq. «Kapsula NAD⁺ ni oshiradi, demak PGC-1α faollashadi va mitoxondriyalar ko‘payadi» degan xulosa bu o‘lchovlarning hammasini chetlab o‘tadi. FOXO1/3 antioksidant javoblarni ham boshqaradi; CPT1B uzun zanjirli yog‘ kislotalarini mitoxondrial oksidlanish tizimiga yetkazishda qatnashadi. Bu sohalararo aloqa CPT1 karnitin tashuvi haqidagi maqolada batafsil yoritilgan.
Matriksda SIRT3 SOD2 va nafas zanjiri tarkibiy qismlarini ham o‘z ichiga olgan metabolik oqsillarni deatsetillaydi; IDH2 NADPH-ga bog‘liq antioksidant tarmoqni qo‘llab-quvvatlaydi. Ammo qondagi jami NAD⁺ ko‘payishi matriksdagi SIRT3 uchun erkin NAD⁺ mavjudligini o‘lchamaydi. Bevosita tekshirish uchun to‘qima tahlili, nishon atsetillanishining validatsiyalangan markerlari va funksional natija kerak. PARP1 ham ikki tomonlama rolga ega: ta’mirlashga NAD⁺ zarur, ammo kuchli DNK shikasti NAD⁺ sarfini faollashtirib, o‘zi energetik zaiflik tug‘dirishi mumkin. Bitta NAD⁺ miqdoriga qarab prekursor «DNKni tuzatadi» deb bo‘lmaydi.
Dastlabki adabiyotda PARP1, CD38, SIRT1 va SIRT3 uchun jadvali «NAD⁺ ni kim birinchi oladi?» reytingiga aylantirilgan. Bu tozalangan ferment parametridan hujayra oqimiga noto‘g‘ri o‘tishdir. munosabati faqat shartlari belgilangan va qo‘shimcha ingibitorlar bo‘lmagan holatda amal qiladi. Hujayrada muayyan kompartmentdagi erkin , faol oqsil miqdori, raqobatchi substratlar, mahsulot ingibitori NAM, DNK shikasti va CD38 topologiyasi muhim. Shartli qiymatlari SIRT3 «birinchi o‘chadi» yoki qarishda PARP1 butun NAD⁺ ni «tortib oladi» degan xulosaga asos bo‘lmaydi. Shu sabab dastlabki matndagi raqamli ierarxiya klinik qoida emas, tanqidiy muhokama mavzusi sifatida saqlanadi.
Intervensiyalarning aksariyati sog‘lom umr davomiyligini emas, qisqa sinovlardagi metabolitlar va ko‘tarimlilikni o‘rganadi. NR va NMN bir xil populyatsiya, teng doza, to‘qima o‘lchovlari va klinik yakuniy nuqta bilan yetarli quvvatga ega to‘g‘ridan-to‘g‘ri randomizatsiyalangan sinovda taqqoslanmagan. Shu sabab alohida dastlabki tadqiqotlar asosida prekursorlardan birini «g‘olib» deb e’lon qilish mantiqan mumkin emas. Quyidagi aniq ta’sirlar nomi ko‘rsatilgan dizaynga tegishli; ular umumiy populyatsiya uchun optimal dozani belgilamaydi.
| Tadqiqot va shakl | Kim va nima o‘rganildi | Topilma va uning chegarasi |
|---|---|---|
| Trammell, NR | Sog‘lom kattalardagi kichik farmakokinetik tadqiqot; turli bir martalik dozalar | Qondagi NAD metabolomi dozaga bog‘liq o‘zgarishi yo‘lning og‘iz orqali biokiraolishini qo‘llaydi. Kohorta va kuzatuv kasallik yoki qarish haqida xulosa bermaydi. |
| Martens, NR | Platsebo nazoratli krossover, o‘rta va katta yoshdagi 30 kishi; 6 hafta kuniga 1000 mg | Qondagi NAD bilan bog‘liq havza oshdi. Boshlang‘ich sistolik bosimi baland kichik guruhdagi signal izlanish xususiyatiga ega; tomir hodisalarining oldini olishini aniqlamaydi va tasdiq talab etadi. |
| Conze, NR | Ortiqcha vaznli kattalarda randomizatsiyalangan 8 haftalik sinov; bir necha NR dozasi | Butun qon NAD⁺ dozaga bog‘liq oshdi; o‘rganilgan muddatda ko‘tarimlilik maqbul bo‘ldi. Bu uzoq muddatli xavfsizlik yoki a’zoga xos foyda dalili emas. |
| Elhassan, NR | Yoshi katta erkaklardagi kichik tadqiqot; 21 kundan keyingi mushak biopsiyalari | Mushak NAD metabolitlari va transkripsion/yallig‘lanish belgilar o‘zgardi. Bu molekulyar natijalar jismoniy funksiya oshganini isbotlamaydi. |
| Irie, NMN | O‘n nafar sog‘lom erkak; 100, 250 va 500 mg bir martalik dozalar | Qisqa muddatli ko‘tarimlilik va NAM metabolitlari tasvirlangan. Kichik ochiq tadqiqot yuqori dozalarni uzoq muddat xavfsiz qabul qilishni belgilamaydi. |
| Yoshino, NMN | Prediabet va ortiqcha vazni bor menopauzadan keyingi 25 ayol; 10 hafta 250 mg/kun | Klamp bilan o‘lchangan mushakda insulin rag‘batlantirgan glyukoza o‘zlashtirilishi yaxshilandi, mushak signalizatsiyasi o‘zgardi. Bu muayyan guruhdagi fiziologik natija; diabet profilaktikasi yoki erkaklarga xos universal ta’sir dalili emas. |
| Pencina, MIB-626 | Ortiqcha vazn yoki semizlikdagi ≥45 yoshli 30 kishi; 28 kun 1000 mg kuniga ikki marta | Aylanib yuruvchi NAD⁺ oshdi; guruhlar o‘rtasida LDL, diastolik bosim va vaznda qisqa muddatli siljishlar bor edi. Mushak NAD⁺ sezilarli oshmadi; kuch, aerob qobiliyat, charchash, fosfokreatin tiklanishi va insulin sezgirligi yaxshilanmadi. |
| Huang, Uthever/NMN | Ro‘yxatga olingan 66 kattadan 62 nafari yakunladi; 60 kun 300 mg/kun | Hujayra NAD⁺/NADH va 6 daqiqalik yurish masofasining guruhlararo o‘zgarishi statistik jihatdan ahamiyatli bo‘lmadi ( va ). Guruh ichidagi o‘sishni platseboga qarshi ta’sir deb ko‘rsatmaslik kerak. |
Yoshino natijasi aynan muayyan guruhda muayyan to‘qima funksiyasi o‘lchangani uchun ahamiyatli; uni «insulin rezistentligini davolash isbotlandi» deb almashtirmaslik lozim. Pencina foydali teskari chegarani ko‘rsatadi: qondagi katta o‘sish mushak NAD⁺ ko‘tarilishi yoki bir necha mushak va metabolik natijalar yaxshilanishi bilan kechmadi. Kichik va qisqa sinovda ayrim yurak-qon tomir ko‘rsatkichlari yaxshilandi, ammo klinik takrorlanishi va sababiy mexanizmi noma’lum. Huang metodologiyani yaqqol ko‘rsatadi: ham biokimyoviy ko‘rsatkich, ham olti daqiqalik yurish platsebo bilan solishtirilgan, biroq guruhlararo tasdiq yo‘q. Faqat NMN guruhi ichidagi foiz o‘zgarishini baholash noto‘g‘ri ijobiy xulosaga olib keladi.
Mavjud matritsada NAD⁺ ni oshirish inson qarishini sekinlashtiradi, neyrodegeneratsiyani oldini oladi yoki umrni uzaytiradi degan ma’lumot yo‘q. Biopsiyadagi ijobiy to‘qima javobi ham ta’sirning qancha qismi NR/NMN bevosita kirishidan, qanchasi NAM, NA va qayta sintezdan kelganini ko‘rsatmaydi. Muayyan shakl ustunligini isbotlash uchun ekspozitsiya, mexanizm va oldindan belgilangan klinik natija yetarli muddat davomida hamda ko‘p martalik taqqoslashlarni nazorat qilib birgalikda ko‘rsatilishi kerak.
NAM hosil bo‘lishi uning NAMPT orqali mahalliy qo‘shilishidan ortib ketganda, oqimning bir qismi nikotinamid-N-metiltransferaza NNMT orqali o‘tadi. reaksiyasida S-adenozilmetionin (SAM) metil guruhini NAM piridin halqasidagi azotga o‘tkazadi. Keyin aldegidoksidaza 2-PY va 4-PY kabi piridon hosilalarini hosil qiladi, ular buyrak orqali chiqariladi. 1-MNA va 2-PY ni o‘lchash katabolizm yo‘nalishini tasdiqlaydi, lekin o‘z-o‘zidan metilom zarari yoki folat tanqisligini isbotlamaydi. Kimyoga doir aniqlik ham muhim: dastlabki matn NNMT hujumini xato ravishda «karbamoilpiridiniy azotiga» bog‘lagan; metillanadigan azot — NAM piridin azoti.
SAH gidrolizlanib gomotsistein hosil qilishi mumkin; gomotsistein jigarda BHMT orqali betain bilan yoki 5-metiltetrahidrofolat va B₁₂ ishtirokida metionin sintaza MTR orqali qayta metillanadi. Bu jarayonlar metionin sikliga bog‘liq, ammo tezligi ovqatlanish holati, jigar va buyrak funksiyasi hamda qaytar reaksiyalar bilan boshqariladi. Shuning uchun NNMT stexiometriyasidan kapsula massasiga qarab gomotsistein qanchaga ortishini hisoblab bo‘lmaydi, NR/NMN uchun hamma uchun bir xil xavfli doza chegarasi belgilanmaydi. Metillangan katabolitlari ko‘paygan tadqiqotlarda plazma gomotsisteini, tegishli matritsadagi SAM/SAH va klinik natijalar alohida ko‘rilishi kerak; bu o‘lchovlarsiz gipoteza ochiq qoladi.
NR/NMN ga vazn bo‘yicha 1:1 nisbatda betainni, shuningdek metilfolat va B₁₂ ni doimiy yuqori dozalarda avtomatik qo‘shish taklifi keltirilgan klinik sinovlardan kelib chiqmaydi. Metil donori yo‘lda qatnashgan taqdirda ham, tanqislik yoki yuqori gomotsistein aniqlanmasdan profilaktik «bufer» qabul qilishning foydasi isbotlanmaydi. Amaliy baholashda insonning holati, dorilari, buyrak funksiyasi va ovqatlanishi hisobga olinishi lozim; laboratoriya natijalarini sharhlaganda giperhomotsisteinemiyaning birlamchi sabablarini yodda tutish kerak. SAM ning biokimyoviy roli hamda substrat sxemasi bilan klinik ta’sir orasidagi farq S-adenozilmetionin va metillanish haqidagi maqolada batafsil ko‘rsatilgan.
Klinikada o‘rganilgan dozalar protokollar tavsifidir, qarishni davolash uchun tasdiqlangan «terapevtik oraliq» emas. NR xlorid qondagi javobi o‘lchangan og‘iz orqali qabul tadqiqotlarida ishlatilgan. NMN ning odatiy og‘iz orqali va mikrokristall shakllari o‘rganilgan; ushbu dalillar bazasida til osti, liposomal yoki ichakda eriydigan shaklning inson to‘qimasiga yetkazilishi yoki klinik natijada ustunligi ko‘rsatilmagan. Kapsula tuzilishidan kelib chiqib birinchi o‘tishni, CD73 yoki SLC12A8 ni chetlab o‘tadi deb aytib bo‘lmaydi. Ishlab chiqaruvchi shunday kinetikani da’vo qilsa, bir xil dozali taqqoslama tadqiqotlar, boshlang‘ich molekula va metabolitlarni kuzatish, namuna olish vaqti hamda oldindan belgilangan matritsa zarur.
CLOCK:BMAL1 NAMPT ning sirkadiyal boshqaruvida qatnashadi, NAD⁺ va SIRT1 esa qayta aloqa orqali hujayra soatlariga ta’sir ko‘rsatadi. Nakahata va Ramsey ishlari biologik mexanizmni namoyish etadi, biroq NAMPT hamma odamda aynan 07:00–09:00 da eng yuqori bo‘lishini yoki kechki NR/NMN uyqusizlik keltirishini isbotlamaydi. Sirkadiyal faza tur, to‘qima, uyqu va ovqatlanish vaqtiga bog‘liq. Shu bois hujayra yoki sichqon fazasini klinik qabul uchun «majburiy ertalabki vaqt»ga aylantirish uslubiy jihatdan noto‘g‘ri; tadqiqotlardagi qabul vaqtini davolash qonuni emas, protokolning bir qismi sifatida tavsiflash kerak.
Apigenin ham kiradigan flavonoidlar CD38 ni biokimyoviy va hujayra tizimlarida to‘sishi kuzatilgan. Og‘iz orqali kombinatsiyani tanlash uchun kerakli kompartmentda erishiladigan erkin konsentratsiya, o‘ziga xoslik va klinik natija haqida ma’lumot zarur; tozalangan ferment uchun qiymati apigenin dozasini NAD⁺ tanqisligi davosiga aylantirmaydi. CD38 nishon sifatidagi aloqasi va flavonoid dalillarining haqiqiy chegaralari apigenin, CD38 va uyqu haqidagi materialda yoritilgan. Resveratrol/pterostilbenning SIRT1 bilan o‘zaro ta’siri ham substrat va tahlil sharoitlariga bog‘liq: «sirtuinni faollashtirish» inson umrini uzaytirishga teng emas. Urolitin A yoki PQQ ni birga qo‘shish mitoxondriya sifati va biogenezi bo‘yicha tadqiqot gipotezasi bo‘lishi mumkin, ammo isbotlangan «uzoq umr triadasi» yoki qat’iy ko‘p komponentli protokol emas.
Sinovlardagi laboratoriya nazorati belgilangan vaqtlarda xavfsizlik va metabolitlarni baholagan; har 12 haftada takrorlanadigan universal kursni emas. NR yoki NMN tadqiqot yoxud alohida klinik vaziyatda ko‘rib chiqilsa, boshlang‘ich holat, mahsulot tarkibi, birga qo‘llanadigan vositalar, jigar va buyrak funksiyasi qayd etilib, o‘zgarishlar ayni usul va matritsada tahlil qilinishi kerak. Qondagi jami NAD⁺ «biologik yosh»ni aniqlovchi mustaqil validatsiyalangan test emas. Gomotsistein mahalliy me’yor oralig‘i va xavf omillarini hisobga olib talqin qilinadi; dastlabki matndagi tor «normal» oraliqni barcha laboratoriya va populyatsiyalarga tatbiq etmaslik kerak.
| Taqqoslash savoli | NR | NMN | Javob uchun amalda nima kerak |
|---|---|---|---|
| Hujayra yuzasidagi kimyoviy o‘tish | Ribonukleozid; tasvirlangan nukleozid tashuvchilari orqali kirishi mumkin | Fosforlangan molekula; ko‘p modellarda defosforlanadi, bevosita transport bahsli | Muayyan inson to‘qimasida boshlang‘ich molekula va fosfatni izotop bilan kuzatish |
| Hujayra ichidagi yo‘l | NRK1/2 → NMN → NMNAT → NAD⁺ | Butun kirsa: NMNAT; defosforlangach: NRK → NMNAT | Kompartment konsentratsiyasi, ferment faolligi va oqim; bitta jami NAD⁺ emas |
| Insonlardagi dalillar | NAD markerlari ko‘tarilishi; ayrim kichik fiziologik signallar | NAD markerlari ko‘tarilishi; bitta to‘qima klampi natijasi va bir necha salbiy funksional natija | Oldindan belgilangan klinik natijali to‘g‘ridan-to‘g‘ri randomizatsiyalangan taqqoslash |
| GEB, mushak, «anti-aging» | Keltirilgan EV tadqiqoti butun NR inson miyasiga bevosita yetganini ko‘rsatmaydi | Umumiy o‘tkazmaslik yoki muayyan shakl ustunligi aniqlanmagan | To‘qimaga xos farmakokinetika, xavfsiz muddat va klinik takrorlash |
Bu taqdim etilgan adabiyotlar korpusiga asoslangan bayoniy tahririy sintez; tizimli sharh yoki rasmiy GRADE bahosi emas. 2026-yil 4-oktabrda muhim xulosa chegaralarini belgilovchi birlamchi ishlar alohida tekshirildi: NMN ning hujayrada qayta ishlanishi va NRK1, og‘iz va vena orqali izotop yo‘llari, Vreones ishida o‘lchangan namuna matritsasi hamda Pencina va Huang sinovlarining guruhlararo natijalari. Qolgan manbalar dastlabki bibliografiya doirasida ishlatildi; yangidan to‘liq qidiruv, mustaqil taqriz yoki har bir havolani qayta tekshirish da’vo qilinmaydi. Tur, doza, ekspozitsiya, kimyoviy shakl, namuna tayyorlash, to‘qima va kuzatuv muddati farqlari jiddiy noaniqlik tug‘diradi. Ayrim yakuniy nuqtalarning salbiy chiqishi boshqa populyatsiyada hech qanday ta’sir bo‘lishi mumkin emasligini isbotlamaydi, biroq foydani allaqachon aniqlangan deb e’lon qilishga yo‘l qo‘ymaydi.
NR va NMN o‘rtasidagi farq, eng avvalo, hujayradan tashqari gidroliz, transport va NAD⁺ ning mahalliy sintezi bo‘yicha tekshiriladigan gipotezalarni yuzaga keltiradi. Har ikkala shakl ham odamlarda o‘lchash mumkin bo‘lgan NAD almashinuvi markerlarini oshirishi mumkin, ammo bu markerlar hozircha universal ravishda yaxshiroq prekursorni tanlash yoki qarishning oldini olish xulosasi uchun yetarli emas. Eng foydali keyingi tadqiqotlar belgilangan oqimni, muayyan to‘qimani va oldindan tanlangan klinik ahamiyatli natijani parallel o‘lchashi, salbiy natijalarni ham ijobiylari bilan yonma-yon ko‘rsatishi kerak.
Bu 29 ta nashrga asoslangan NR, NMN va NAD⁺ almashinuvi haqidagi bayoniy sharhdir. 2026-yil 4-oktabrdagi tahririy versiyada farmakokinetik va klinik natijalarni talqin qilishdagi muhim tafovutlar manzilli ravishda tekshirildi. Oldindan belgilangan protokol bo‘yicha to‘liq qidiruv, meta-tahlil va har bir ishdagi og‘ish xavfini rasmiy baholash o‘tkazilmadi.
Prekursorlarning hujayradagi o‘zgarish yo‘llari, qondagi NAD⁺ o‘lchovlari, alohida to‘qimalardagi miqdor va klinik natijalar alohida ko‘rib chiqiladi. Plazmadan ajratilgan pufakchalar haqidagi ma’lumotlar miyadagi metabolitni bevosita o‘lchash emas. Natija kimyoviy shakl, yuborish yo‘li, davomiylik, populyatsiya va yakuniy nuqtaga bog‘liq; biomarker o‘zgarishi funksiya yaxshilanishi yoki uzoq muddatli foydani isbotlamaydi.
NMN tarkibidagi fosfat membranadan passiv o‘tishni qiyinlashtiradi. Bir necha hujayra modelida u avval tashqarida NR ga defosforlanadi; bu yo‘l insonning barcha to‘qimalarida universal ekani va bevosita transport ulushi aniqlanmagan.
Yo‘q. Butun qon, mushak biopsiyasi va miya turli matritsalardir. NMN bo‘yicha bir tadqiqotda aylanib yuruvchi NAD⁺ sezilarli oshgan, ammo mushak NAD⁺ va funksional testlar ahamiyatli yaxshilanmagan.
Bir xil populyatsiya, doza, to‘qima o‘lchovlari va klinik natijali yetarli bevosita qiyosiy sinov yo‘q. Alohida biomarkerlarga qarab tanlashga hali erta.
NNMT nikotinamidni metillashda SAM sarflaydi, biroq keltirilgan sinovlar betain va NR/NMN ning qat’iy nisbatini klinik jihatdan zarur deb tasdiqlamaydi.