CPT1: karnitin tashish tizimi va yog‘ kislotalari oksidlanishi — NutriFit
Karnitinpalmitoiltransferaza-1: karnitin tashish tizimi, malonil-CoA va β-oksidlanish
Uzun zanjirli yog‘ kislotalarining mitoxondriyaga yetkazilishi, CPT1 to‘qima izoformalari va malonil-CoA orqali boshqarilishi haqidagi chuqur monografiya. Kataliz, AMPK–ACC, β-oksidlanish, energetik hisoblar, metabolik moslashuvchanlik va irsiy nuqsonlar tahlil qilinadi. Karnitinning klinik va sport tadqiqotlari, TMAO mikrob yo‘li hamda farmakologik yondashuvlar dalillarning chegaralari bilan ko‘rib chiqiladi.
Uzun zanjirli yog‘ kislotasi hujayraga kirishi bilanoq mitoxondrial yoqilg‘iga aylanmaydi. Avval u faollashtiriladi, so‘ng atsil guruhi ichki mitoxondrial membrana orqali tashiladi, keyin esa β-oksidlanish fermentlari uglerod zanjirini ketma-ket qisqartiradi. Karnitinpalmitoiltransferaza-1, yoki CPT1, bu ketma-ketlikka kirishni boshqarib, yog‘ kislotalari mavjudligini hujayraning energetik holati bilan bog‘laydi. Uning ingibitori malonil-CoA ayni vaqtda lipidlar sintezi uchun qurilish materiali bo‘ladi, shu sababli bitta metabolit qarama-qarshi yo‘nalishdagi ikki jarayonni muvofiqlashtirishga yordam beradi.
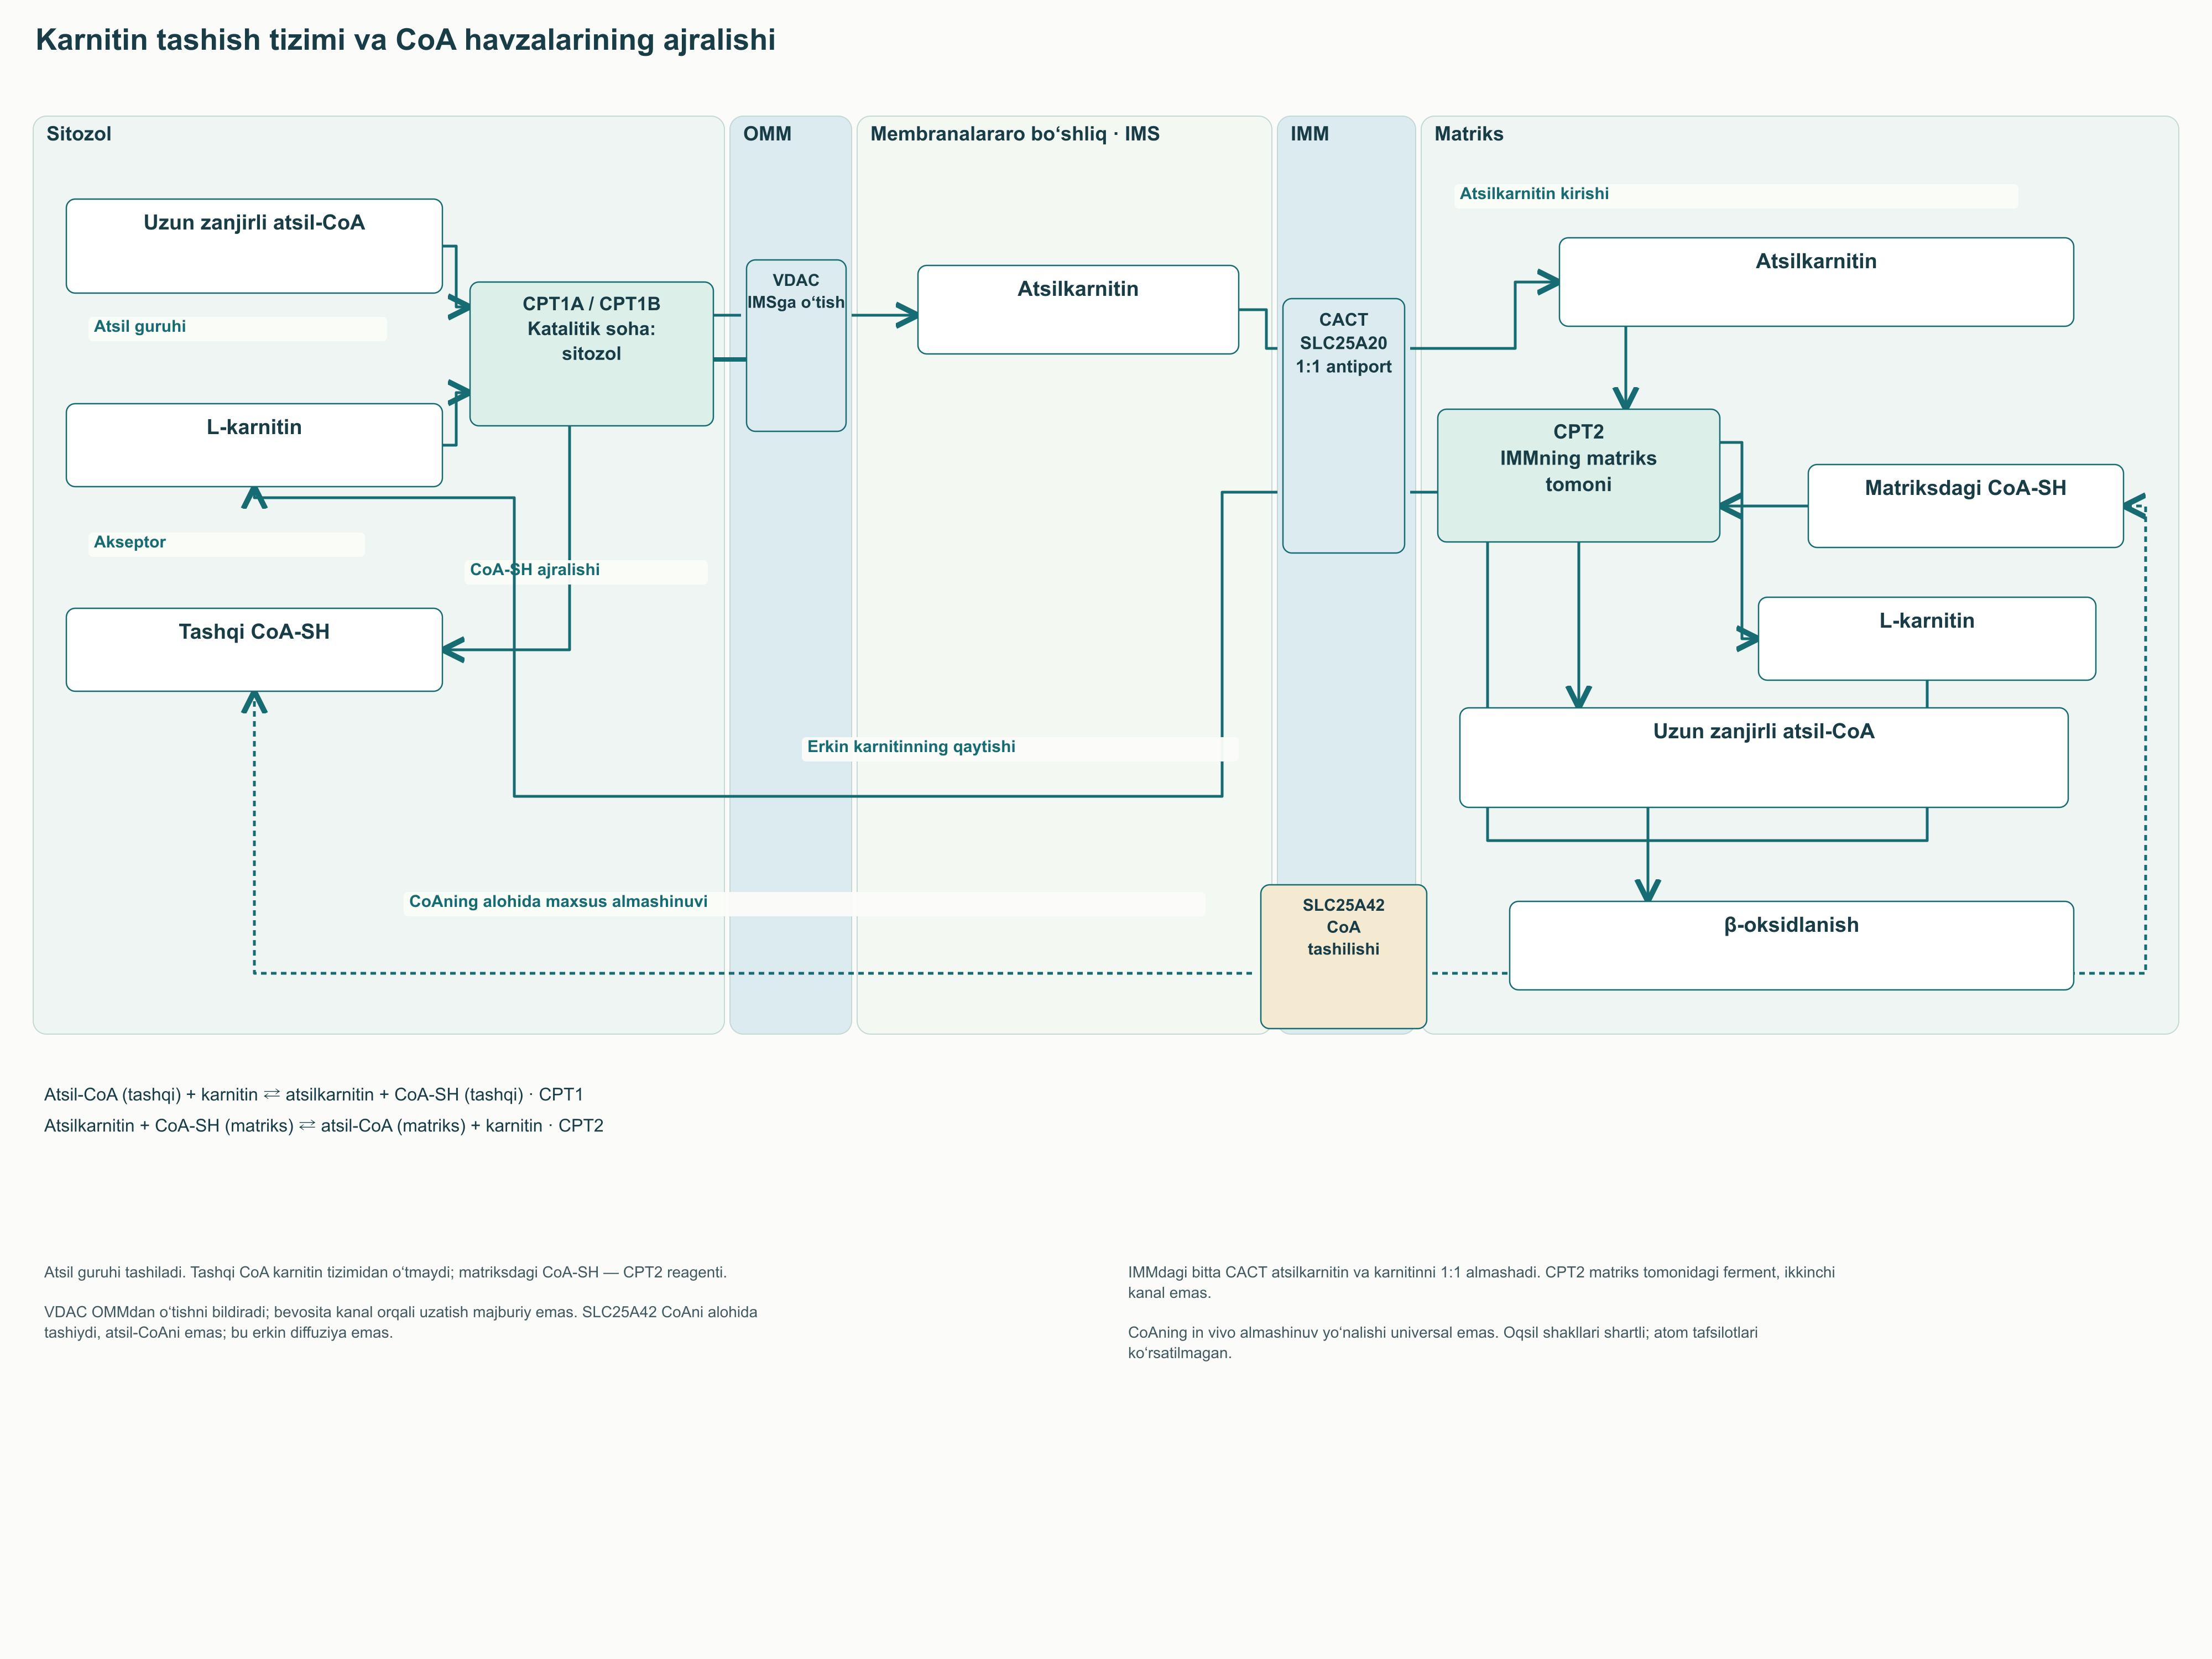
Karnitin tashish tizimi CPT1, karnitin–atsilkarnitin translokazasi CACT va CPT2 dan iborat. U koferment A ning mitoxondriyadan tashqaridagi va matriksdagi jamlanmalari o‘rtasidagi farqni saqlagan holda atsil guruhini tashiydi; CoA tashuvchisi SLC25A42 mavjudligi uzun zanjirli atsil-CoA uchun bunday yo‘l zaruratini yo‘qotmaydi. Tizimning boshqarilishi CPT1 izoformasi, malonil-CoA ning mahalliy konsentratsiyasi, membrana muhiti, AMPK, atsetil-CoA-karboksilazalar va transkripsion dasturlarga bog‘liq. Biroq substrat kirishining tezlashishi keyingi reaksiyalar, nafas zanjiri va ATP ehtiyoji bu oqimni qabul qila olgandagina foydali.
Ushbu monografiya tashish arxitekturasi, kataliz kimyosi, to‘qima farqlari, energetik balans va yog‘ kislotalari oksidlanishi buzilishining oqibatlarini ko‘rib chiqadi. Irsiy nuqsonlar, karnitin qo‘shimchalari, sport tadqiqotlari va TMAO hosil bo‘lishining mikrob yo‘li alohida tahlil qilinadi. Biokimyoviy mexanizm, hayvon tajribasining natijasi va odamdagi klinik ta’sir turlicha daliliy kuchga ega, keyingi matnda bu farq saqlanadi. 106 ATP hisobi tanlangan P/O koeffitsiyentlariga asoslangan model sifatida, CPT1 va mikrobiotaga eksperimental aralashuvlar esa qo‘llash chegaralari bilan beriladi.
1. Nega uzun zanjirli yog‘ kislotalariga tashish tizimi kerak
1.1. Ikki membrana va funksional ajratilgan ikkita CoA jamlanmasi
Mitoxondriyaning tashqi va ichki membranalari turli vazifalarni bajaradi. Tashqi membranada sitozol va membranalararo bo‘shliq o‘rtasida ko‘plab kichik metabolitlar almashinadigan VDAC kanallari mavjud. Ichki membrana tashishni ancha qat’iy nazorat qiladi: ko‘pchilik qutbli moddalar oqimi muayyan tashuvchi oqsillarga bog‘liq. Shu tufayli protonlarning elektrokimyoviy gradiyenti va oksidlovchi fosforlanish uchun zarur sharoitlar saqlanadi.
Ichki membrananing past passiv o‘tkazuvchanligi undan CoA, ionlar yoki boshqa qutbli birikmalar umuman o‘ta olmaydi degani emas. 2009-yilda Fiermonte va hamkasblari odam SLC25A42 sini ifodalab, uni liposomalarda qayta tikladi va CoA hamda bir qator adenin nukleotidlarining almashinuv mexanizmi orqali tashilishini ko‘rsatdi. Bu erkin diffuziyaning yo‘qligi bilan maxsus tashish mavjudligini farqlash uchun bevosita eksperimental asosdir. Mitoxondriyalar tashqi CoA dan butunlay ajratilgan degan da’vo bu ma’lumotlarga zid.
CoA-SH — atsil qoldiqlari birikadigan reaktiv tiol guruhiga ega koferment. Uning soddalashtirilgan tuzilma ketma-ketligini adenozin-3′-fosfat-5′-difosfat — pantotenat — sisteamin-SH deb yozish mumkin. Pantotenatning o‘zida β-alanin qismi allaqachon bor, shuning uchun uni sxemaga yana alohida qo‘shish molekulaning bir qismini takrorlar edi. Fosfat guruhlari CoA ni qutbli va zaryadlangan qiladi, tioefir bog‘i esa faollashtirilgan uglerod guruhlarini reaksiyalar o‘rtasida tashish imkonini beradi.
Sitozoldagi va matriksdagi CoA jamlanmalari funksional jihatdan kompartamentlarga ajratilgan, ammo abadiy yopiq ikkita rezervuar emas. Mitoxondriyadan tashqaridagi CoA yog‘ kislotalarini faollashtirish va lipidlarni yig‘ishda, matriksdagi CoA esa piruvatdegidrogenaza, trikarboksil kislotalar sikli va β-oksidlanishda qatnashadi. Ularning tarkibi tashish, sintez, parchalanish hamda erkin va atsillangan shakllar o‘rtasidagi taqsimlanish bilan belgilanadi. Aynan shu sababli umumiy CoA miqdori alohida reaksiya uchun erkin CoA-SH mavjudligiga teng emas.
Uzun zanjirli atsil-CoA uchun vaziyat boshqacha: uning atsil guruhini matriksga yetkazishning kanonik yo‘li karnitin tashish tizimidan foydalanadi. SLC25A42 orqali CoA tashilishi palmitoil-CoA tashilishi emas va CPT1, CACT hamda CPT2 o‘rnini bosmaydi. Tashqi tomonda atsil guruhi bitta CoA molekulasidan olinib, matriksda boshqasiga biriktiriladi. Bu ajratish tizim zaruratini ham, turli kompartamentlarda CoA ning mustaqil boshqarilishini ham tushuntiradi.
Kardiolipin ichki membrana tashkil topishi va ko‘plab mitoxondrial oqsillar ishini qo‘llab-quvvatlaydi, biroq uning mavjudligi to‘siqning barcha tanlovchanligini o‘zi tushuntirmaydi. Xuddi shunday, matriksning manfiy potensiali bioenergetika uchun muhim, ammo ichki membranani universal o‘tib bo‘lmas devorga aylantirmaydi. Protonlar sizishi, ionlar tashilishi va maxsus tashuvchilar faoliyati gradiyentni saqlash bilan bir vaqtda mavjud. CPT1 ni tushunish uchun shu funksional manzara yetarli; to‘qima va sharoit ko‘rsatilmagan qat’iy kardiolipin foizlari, teshik o‘lchamlari va potensial qiymatlari soxta aniqlik yaratar edi.
1.2. Yog‘ kislotasini faollashtirish: energiya β-oksidlanishdan avval sarflanadi
Yog‘ kislotalari hujayralarga oziq-ovqat, lipoproteinlar va yog‘ to‘qimasidan keladi. Ularning qabul qilinishi va hujayra ichida taqsimlanishi CD36, FATP oilasi oqsillari va boshqa ishtirokchilar, shuningdek membrananing fizik xususiyatlari bilan bog‘liq. Keyin atsil-CoA-sintetazalar oksidlanish, triatsilglitserollar sintezi yoki fosfolipidlar tuzilishiga yo‘naltirilishi mumkin bo‘lgan faollashtirilgan hosilalarni yaratadi. Demak, yog‘ kislotasi kirishining ortishi uning uglerodi qaysi yo‘lga tushishini hali belgilamaydi.
Faollashtirish reaksiyasi R–COOH + ATP + CoA-SH → R–CO–S–CoA + AMP + PPᵢ tarzida yoziladi. Bu yerda R yog‘ kislotasining uglevodorod qismini, PPᵢ esa noorganik pirofosfatni bildiradi. Keyingi PPᵢ + H₂O → 2 Pᵢ gidrolizi umumiy jarayonning yo‘nalishiga yordam beradi. ATP AMP ga aylangani uchun boshlang‘ich reaksiyada bitta ATP molekulasi qatnashsa-da, energetik xarajat ikkita ATP ekvivalentiga teng.
Uzun zanjirli atsil-CoA-sintetazalar oilasida to‘qimadagi ifodalanish, joylashuv va substratga moyillik farqlanadi. ACSL1 yog‘ kislotalarining oksidlovchi ishlatilishi uchun ayniqsa muhim, ACSL3 lipid tomchilari bilan bog‘liq, ACSL4 esa ko‘p to‘yinmagan zanjirlarning fosfolipidlarga kiritilishida qatnashadi. Bu bog‘lanishlar muayyan hujayra tizimlaridagi ustun vazifalarni ifodalaydi, har bir sintezlangan atsil-CoA ning yagona taqdirini emas. Substrat mavjudligi va qo‘shni fermentlar bilan o‘zaro ta’sir oqim taqsimlanishini o‘zgartirishi mumkin.
Tashqi membrana preparatlarida CPT1A, ACSL1 va VDAC ni o‘z ichiga oluvchi komplekslar topilgan. Bunday natijalar faollashtirish va atsil guruhini topshirishning fazoviy bog‘liqligini qo‘llaydi, ammo har bir molekula doimo bir faol markazdan boshqasiga bevosita uzatilishini isbotlamaydi. Aniqlangan oqsillar assotsiatsiyasi bilan miqdoriy isbotlangan substrat kanalini farqlash muhim. Mutaxassis uchun bu ferment joylashuvi uning umumiy ifodalanishi kabi ahamiyatli bo‘lishi mumkinligini anglatadi.
1.3. CPT1, CACT va CPT2: uzluksiz bitta yo‘l
Fiziologik pH da karnitin musbat zaryadlangan trimetilammoniy guruhi va manfiy zaryadlangan karboksilatni tutadi. Uning soddalashtirilgan yozuvi: ⁻OOC–CH₂–CH(OH)–CH₂–N⁺(CH₃)₃. Bunday svitter-ion tuzilma suvli muhitda eruvchanlikka mos keladi, C3 dagi gidroksil esa atsil guruhini qabul qiladi. Atsillanish tashiladigan kimyoviy yukni o‘zgartirib, karnitinni tizimning qaytuvchi tarkibiy qismi sifatida saqlaydi.
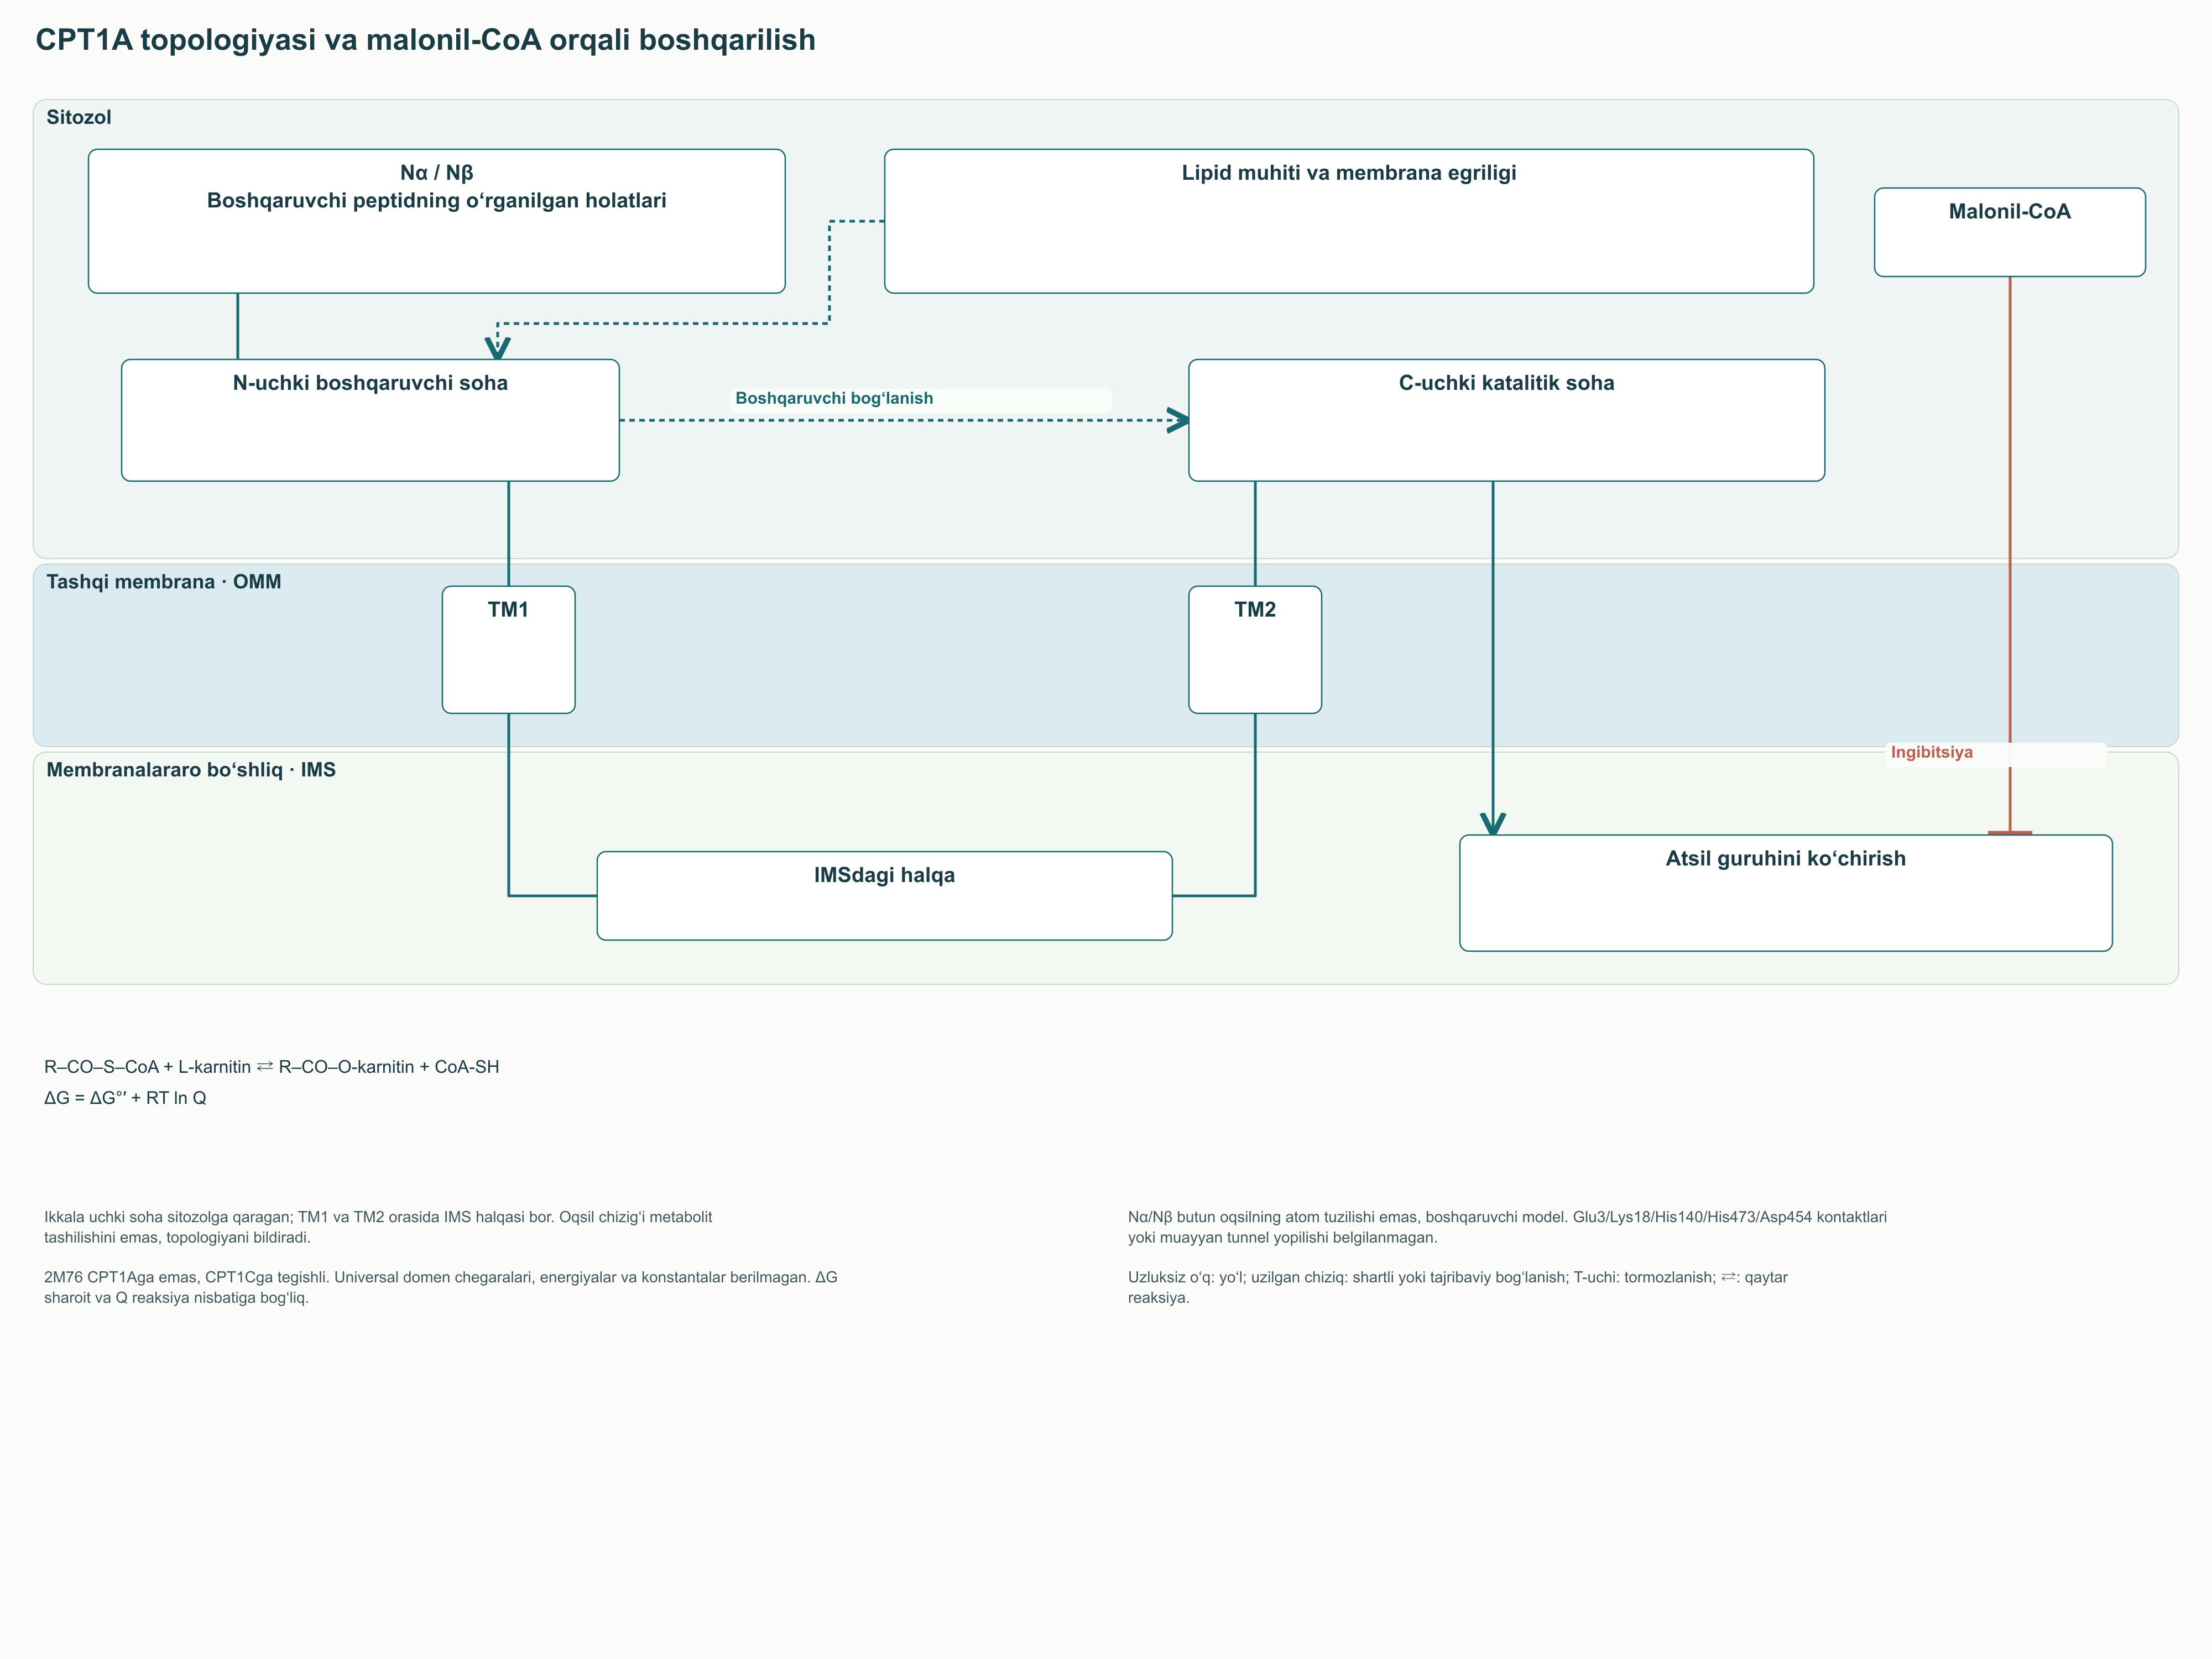
CPT1A va CPT1B tashqi mitoxondrial membranaga joylashgan. Kalamush jigaridagi CPT1 topologiyasining eksperimental tadqiqotida oqsilning proteazalar va antitanalarga ochiqligi ikkita transmembran segment, sitozolga qaragan N- va C-uchlar va membranalararo bo‘shliqdagi halqani ko‘rsatdi. Bunday joylashuv fermentning tashqi atsil-CoA va karnitinga yetishiga mos. Bu katalitik markazning matriks ichida bo‘lishini talab qilmaydi.
Tizimning birinchi reaksiyasi: atsil-CoA₍tashqi₎ + L-karnitin ⇄ atsilkarnitin + CoA-SH₍tashqi₎. U atsil guruhini karnitin gidroksil guruhining kislorodiga o‘tkazadi. Ajralgan CoA tashqi jamlanmada qoladi, atsilkarnitin esa ichki membranaga yetish imkonini oladi. Bu yerda karnitin sarflanadigan energiya manbai emas, guruh tashuvchisidir.
SLC25A20 kodlaydigan CACT atsilkarnitinni ichki membrana orqali asosan erkin karnitin bilan almashib tashiydi. Fiziologik sxemada bu ketma-ket turgan ikkita CACT emas, substratlari qarama-qarshi yo‘nalishda oqadigan bitta tashuvchi oqsildir. Liposomalardagi rekombinant tashuvchi bilan ish karnitin almashinuvi va uning atsil hosilalari tashilishini bevosita ko‘rsatdi. Navbatma-navbat kirish modeli membranani teshib o‘tadigan doim ochiq kanal bo‘lmasdan tashishni tushuntiradi.
Matriks tomonda CPT2 teskari ko‘chirishni bajaradi: atsilkarnitin + CoA-SH₍matriks₎ ⇄ atsil-CoA₍matriks₎ + L-karnitin. Hosil bo‘lgan atsil-CoA β-oksidlanish fermentlari uchun mavjud, karnitin esa CACT orqali qaytadi. Umuman, tizim atsil guruhini CoA jamlanmalari o‘rtasida yetkazib, tashuvchini qayta tiklaydi. Tirik hujayradagi yo‘nalish har bir transferaza reaksiyasining qaytmasligi bilan emas, substratlar mavjudligi va atsil-CoA ning keyingi ishlatilishi bilan saqlanadi.
Erkin qisqa va ayrim o‘rta zanjirli yog‘ kislotalari CPT1 ga kamroq bog‘liq yo‘llardan foydalanishi mumkin. Bunda «o‘rta» va «uzun» zanjir chegarasi barcha to‘qima va sharoitlarda bir xil emas, ayniqsa C12 uchun. Juda uzun zanjirlar ko‘pincha avval peroksisomalarda qisqaradi, undan keyin mahsulotlar mitoxondrial almashinuvga kirishi mumkin. Shunday qilib, karnitin tizimi uzun zanjirlarning markaziy yo‘li, ammo barcha lipid katabolizmining yagona tashish tizimi emas.
2. CPT1 oilasining uch oqsili va to‘qimalarning turli vazifalari
2.1. CPT1A va CPT1B: o‘xshash reaksiya, turli kinetika
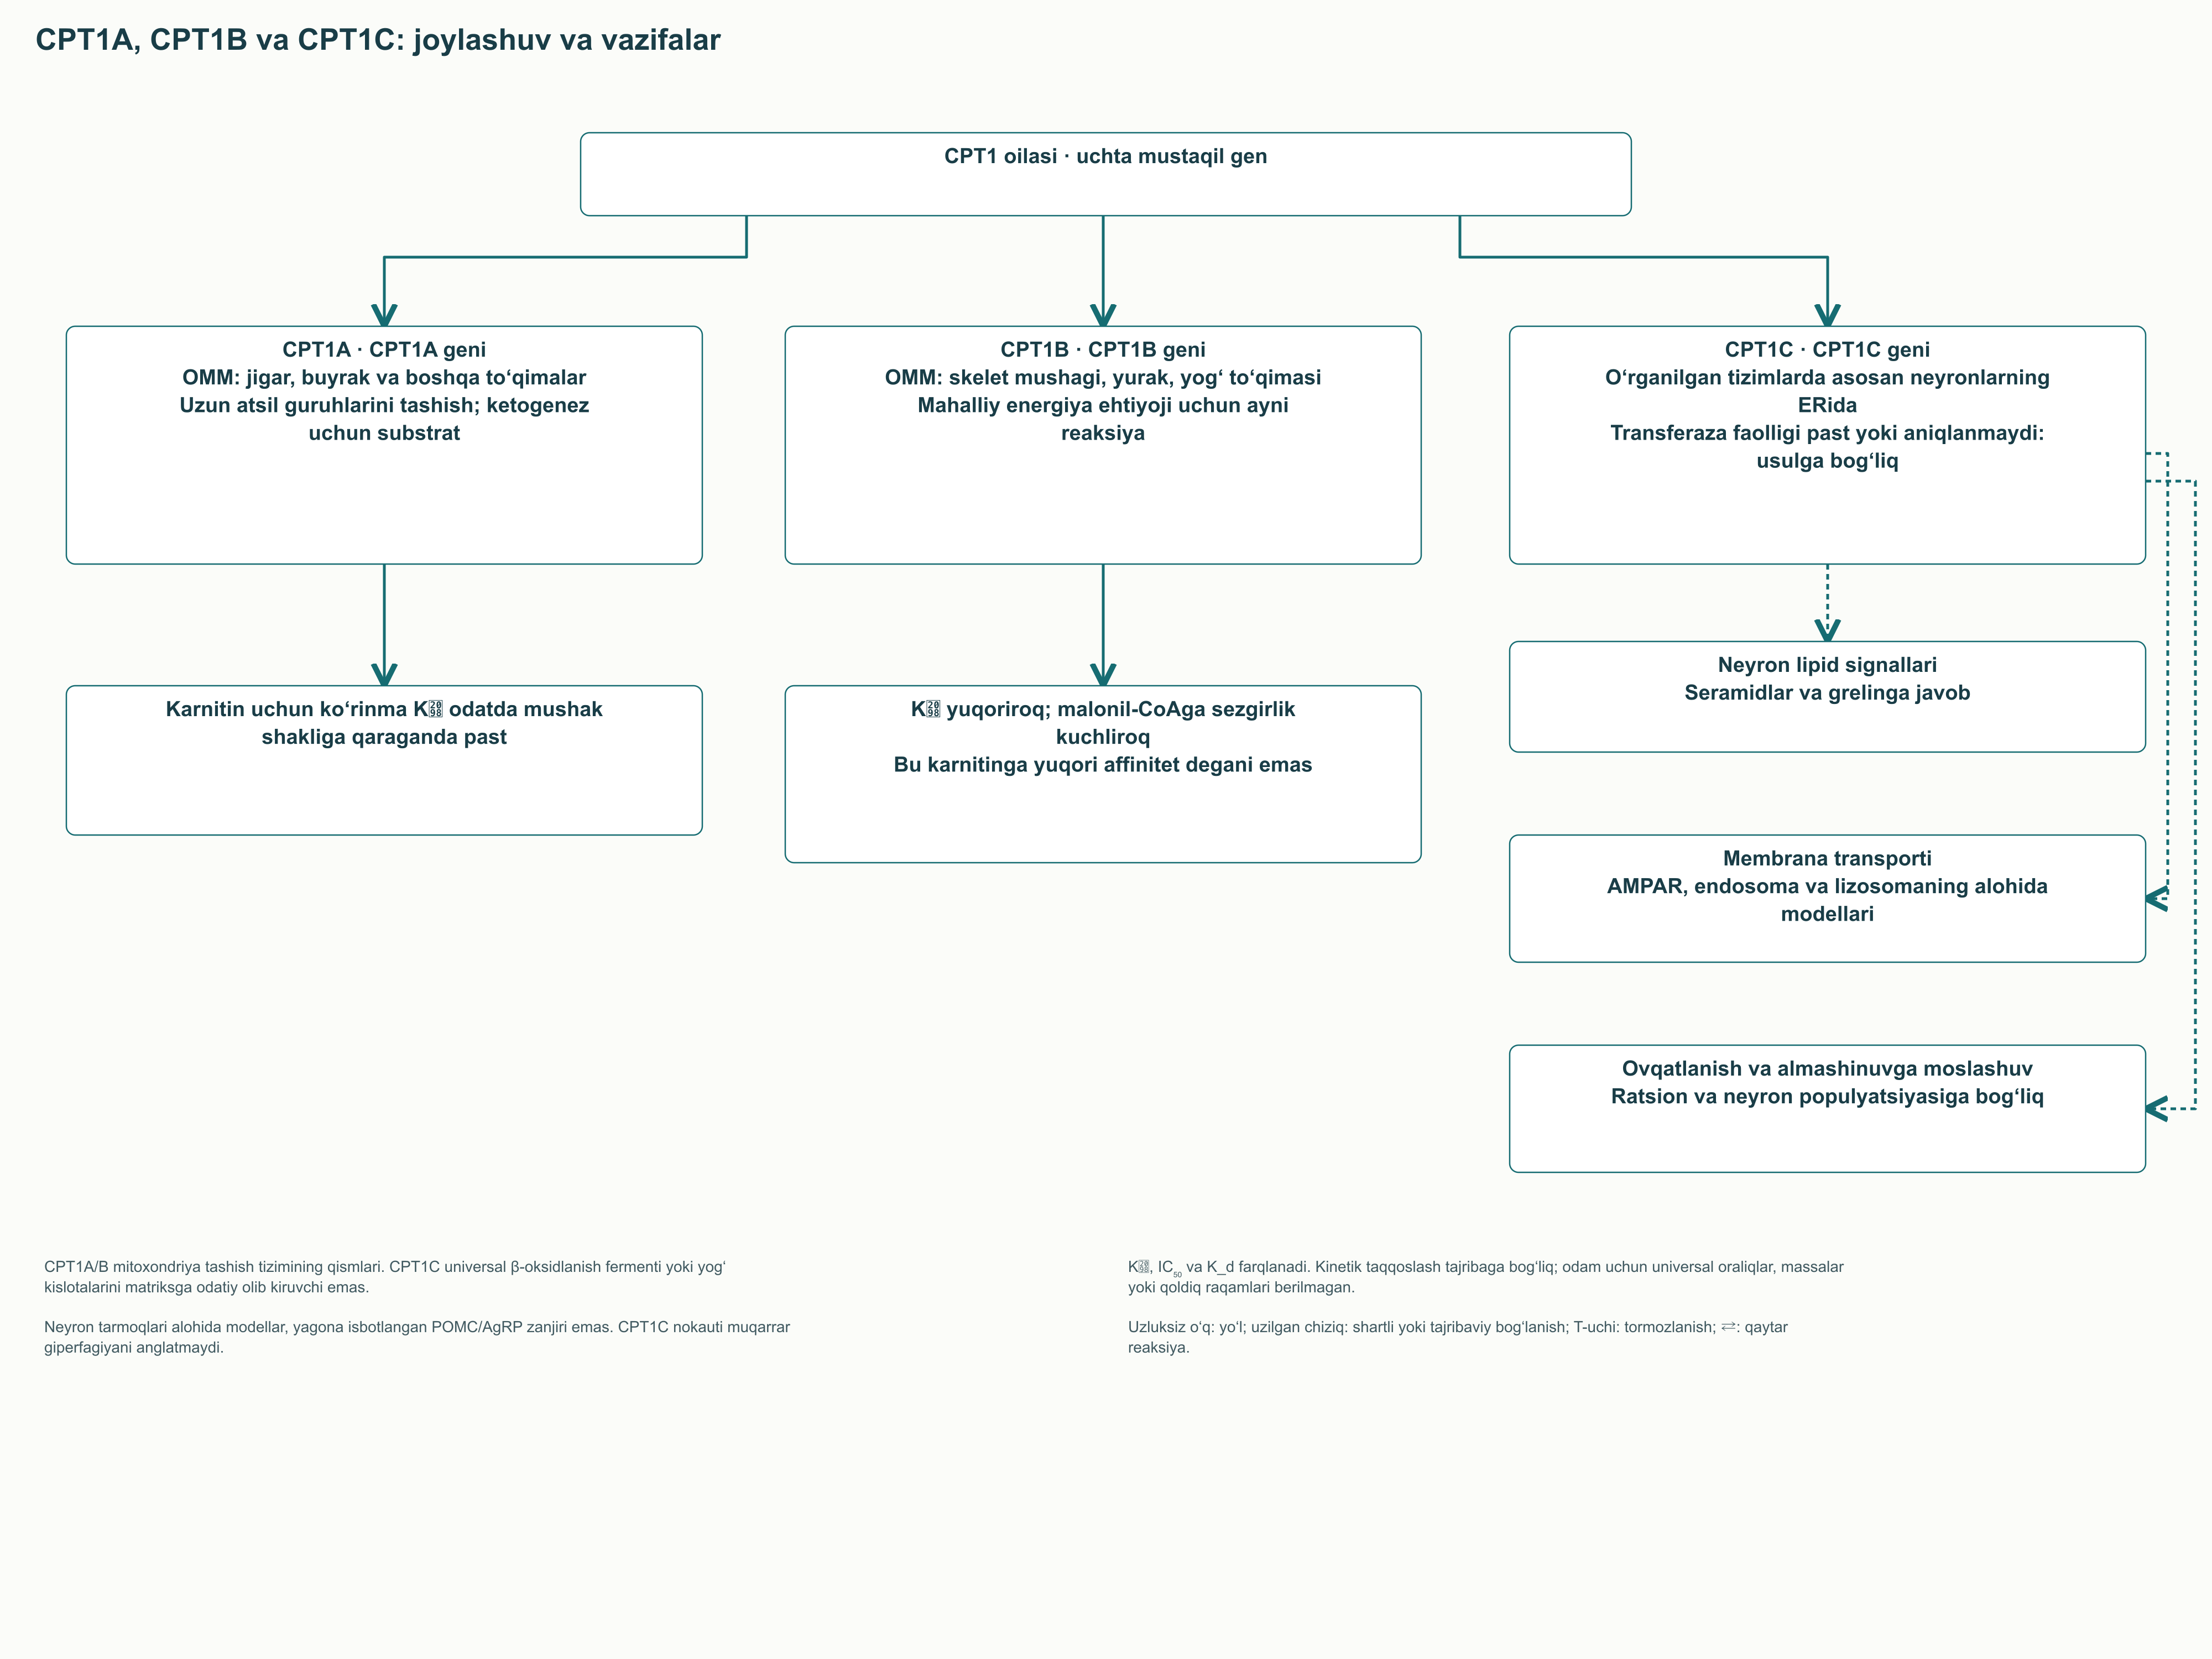
«Jigar» va «mushak» izoformalari atamalarini so‘zma-so‘z tushunmasak, ular foydalidir. CPT1A jigar va qator boshqa to‘qimalarda uchraydi; CPT1B skelet mushaklari, yurak va ayrim yog‘ hujayralariga xos. Jigarda yog‘ kislotalari oksidlanishi ochlik sharoitidagi almashinuvga energiya va ketogenezga atsetil-CoA beradi. Qisqarayotgan mushak va miokardda u avvalo mahalliy ATP ehtiyojini ta’minlashda qatnashadi.
CPT1A ning o‘zi keton tanachalarini sintezlamaydi. U uzun zanjirli substrat kirishini boshqaradi, atsetoatsetat va β-gidroksibutirat hosil bo‘lishi esa keyingi β-oksidlanish va ketogenez fermentlarini talab qiladi. Yurak energiyasini ta’minlashda yog‘ kislotalari ulushi yuklama, substrat mavjudligi va kasallikka qarab o‘zgaradi. Shu sababli «yog‘dan olinadigan energiya»ning doimiy foizi ham, CPT1 ning universal maksimal faolligi ham barcha fiziologik holatlarni ifodalamaydi.
Turli to‘qimalardan ajratilgan mitoxondriyalarni klassik taqqoslashda karnitin bo‘yicha ko‘rinma Kₘ taxminan yigirma baravar farqlangan. Yetuk kalamush va odam homilasi jigarida u taxminan 35 mkmol/l bo‘lgan, qator mushak va yurak preparatlarida esa ancha yuqori. Bundan tashqari mushak CPT1 si malonil-CoA bilan kuchliroq ingibirlangan. Shu taqqoslashda mushak shaklining karnitin Kₘ qiymati yuqoriroq bo‘lgan, demak uning malonil-CoA ga yuqori sezgirligini karnitinga yuqori yaqinlik bilan tushuntirib bo‘lmaydi.
Kₘ, IC₅₀ va K_d ni o‘zaro almashtiriladigan xususiyatlar sifatida o‘qib bo‘lmaydi. Kₘ reaksiya tezligining substrat konsentratsiyasiga bog‘liqligi parametri, IC₅₀ o‘lchangan faollikni yarmiga kamaytiradigan ingibitor konsentratsiyasi, K_d esa muvozanat bog‘lanishini tasvirlaydi. Uchovlon o‘lchash tizimiga, lekin turlicha bog‘liq. Membrana fermenti uchun karnitin konsentratsiyasi, atsil-CoA ning albuminga bog‘lanishi, membranani tayyorlash va organizm turi ayniqsa ahamiyatli.
Xususiyat
CPT1A
CPT1B
CPT1C
Gen
CPT1A
CPT1B
CPT1C
Odatdagi joylashuv
Tashqi mitoxondrial membrana
Tashqi mitoxondrial membrana
O‘rganilgan tizimlarda asosan neyronlarning endoplazmatik retikulumi
Xos to‘qimalar
Jigar, buyrak va boshqa to‘qimalar
Skelet mushaklari, yurak, yog‘ to‘qimasi
Asab tizimi; o‘sma hujayralarida ham o‘rganilmoqda
Asosiy aniqlangan vazifa
Uzun zanjirli atsilkarnitin hosil qilish
Oksidlovchi to‘qimalarda xuddi shu tashish reaksiyasi
Eksperimental modellarda neyron lipid jarayonlari va membrana tashilishini boshqarish
Malonil-CoA
Ingibirlaydi; sezgirlik sharoitga bog‘liq
Taqqoslanadigan tajribalarda odatda kuchliroq sezgirlik
Bog‘lanish va boshqaruv ta’sirlarini CPT1A/B kinetikasiga tenglashtirib bo‘lmaydi
Karnitin kinetikasi
Klassik to‘qima taqqoslashida pastroq Kₘ
Qator mushak preparatlarida yuqoriroq Kₘ
Usulga bog‘liq past yoki aniqlanmaydigan transferaza faolligi
«Faollashtirish» yoki «ingibirlash»ning universal davolash qoidasi yo‘q
Jadval barcha odam to‘qimalari uchun ma’lumotnoma konstantalarini bermay, funksional sinflarni taqqoslaydi. Izoforma nomlari va kinetik farqlar yo‘nalishi qiyosiy tajribalar bilan, CPT1C xususiyatlari esa alohida hujayra tadqiqotlari bilan qo‘llangan. Bitta preparatning aniq qiymatlarini qo‘shimcha asossiz boshqa to‘qima oqimi hisobiga ko‘chirib bo‘lmaydi. Qo‘shimcha ta’sirini «CPT1 ni karnitin bilan to‘yintirish» orqali tushuntirishga urinishda bu ayniqsa muhim.
2.2. CPT1C: energetik signallarni neyron vazifasi bilan bog‘lash
CPT1C ikki mitoxondrial izoformadan faqat to‘qima ifodalanishi bilan farqlanmaydi. Hujayra joylashuvi tadqiqotlarida u asosan neyronlarning endoplazmatik retikulumida aniqlangan. Ayrim dastlabki ishlar standart karnitinpalmitoiltransferaza faolligini topmagan, Sierra va hamkasblari esa mikrosomal preparatlarda zaif faollik aniqlagan. Ularning eksperimental tizimlarida katalitik samaradorlik CPT1A dan past bo‘lgan, odatiy mitoxondrial β-oksidlanishda qatnashishi tasdiqlanmagan.
Natijalarning bunday turlichaligi CPT1C ni butunlay faol bo‘lmagan oqsil deb e’lon qilishga ham, karnitin tizimining teng ahamiyatli uchinchi darvozasi sifatida tasvirlashga ham asos bo‘lmaydi. O‘lchash usuli, hujayra fraksiyasi va taxminiy substrat kuzatilgan faollikka ta’sir qiladi. Malonil-CoA bog‘lanishi sensor vazifa farazini qo‘llaydi, ammo yagona keyingi signalni belgilamaydi. CPT1C ning hujayradagi harakatini muayyan eksperimental tizim orqali ta’riflash kerak.
Grelin yuborilgan sichqon modelida CPT1C orqali parallel signal tarmog‘i va gipotalamus seramidlarining o‘zgarishi ko‘rsatilgan. CPT1C siz hayvonlarda grelinning ishtahani rag‘batlantiruvchi ta’siri susaygan, seramidning markaziy yuborilishi esa javobning bir qismini tiklay olgan. Bunday natija neyron lipid almashinuvini ovqatlanish xulqi boshqarilishi bilan bog‘laydi. Bu odamda CPT1C faolligini oshirish yoki kamaytirish oldindan aytiladigan davolash samarasini berishini isbotlamaydi.
Boshqa tajribalar CPT1C ni AMPA retseptorlarining hujayra yuzasiga chiqishi bilan bog‘laydi. GluA1 modellarida palmitoillanish va retseptorning endoplazmatik retikulumdan tashilishi o‘zgarishlari ko‘rib chiqilgan, lekin bu «to‘yish — POMC neyronlari qo‘zg‘alishi» zanjiriga shunchaki qo‘shib bo‘lmaydigan alohida dalil yo‘nalishidir. Oqsilning membrana tashilishidagi ishtiroki kech endosomalar, lizosomalar va protrudin bilan o‘zaro ta’sir misolida ham o‘rganilgan. Bu ishlar funksional manzarani kengaytirib, ayni vaqtda CPT1C uchun bitta universal mexanizm nega yetarli emasligini ko‘rsatadi.
CPT1C nokautining fenotipi ham oziqlanish va o‘rganilgan neyron populyatsiyasiga bog‘liq. Dastlabki tadqiqotda standart ratsiondagi sichqonlar kamroq yeb, kamroq vaznga ega bo‘lgan, ammo yog‘i ko‘p ratsionda yog‘ to‘plashga ko‘proq moyil bo‘lgan. Demak, dastlabki «nokaut giperfagiya chaqiradi» formulasi umumiy qoida sifatida noto‘g‘ri. Yangi shartli modellar, jumladan SF1 neyronlaridan CPT1C ni olib tashlash, kontekstni hisobga olish zaruratini bekor qilmay, to‘qimaga xos sababiyatni aniqlashtiradi.
3. Kataliz va malonil-CoA: oqimni almashtirish haqida nimalar ma’lum
3.1. Atsil guruhini ko‘chirish va atom tafsilotlarining chegaralari
CPT1 ning kimyoviy vazifasini R–CO–S–CoA + L-karnitin ⇄ R–CO–O-karnitin + CoA-SH umumiy reaksiyasi bilan ifodalash mumkin. Tioefir karnitinning kislorodli efiriga aylanadi, uglerod zanjiri esa saqlanadi. Katalizning umumiy modellarida gidroksil guruhining faollashishi uning atsil-CoA karbonil uglerodiga hujumini yengillashtiradi. Tetraedrik holat orqali bog‘lar qayta tuzilishi erkin CoA-SH va atsilkarnitinning chiqishi bilan yakunlanadi.
Karnitinatsiltransferazalar oilasi uchun strukturaviy tadqiqotlar va mutagenez konservativ gistidin hamda boshqa qoldiqlarning katalitik muhitda qatnashishini qo‘llaydi. Biroq gomolog tuzilmasi, ketma-ketlik o‘xshashligiga asoslangan model va muayyan kompleksning bevosita aniqlangan tuzilmasi — dalilning turli darajalari. Karnitinatsetiltransferazaga asoslangan CPT1 modeli qoldiqlarni tanlash va keyingi mutagenez uchun ishlatilgan. Natijalar alohida pozitsiyalar ishtirokini qo‘llaydi, ammo o‘tish holatining barcha geometriyasi yoki substratlar va oqsil orasidagi universal kontakt tarmog‘ini aniqlamaydi.
Bu monografiyada ko‘chirishning molekulyar mantiqi saqlanadi, lekin tasdiqlanmagan atom geometriyasi ishlatilmaydi. Qoldiq raqami oqsil, tur va dastlabki ishni ko‘rsatishni talab qiladi, mutatsiya tufayli faollik yo‘qolishi esa o‘zi muayyan vodorod bog‘ini isbotlamaydi. Xuddi shunday, reaksiya qaytuvchanligi uning standart erkin energiyasi aniq nol degani emas. Yo‘nalish kimyoviy potensiallar, reagentlar nisbati va ularning qo‘shni jarayonlarda sarflanishiga bog‘liq.
Konsentratsiyalar va termodinamika orasidagi aloqani ΔG = ΔG°′ + RT ln Q ifodasi tasvirlaydi. Ko‘chirish reaksiyasi uchun faolliklarning mos yaqinlashuvida Q = [atsilkarnitin][CoA-SH] / ([atsil-CoA][karnitin]). Bu yerda R gaz doimiysi, T mutlaq harorat, ΔG°′ esa standart o‘zgartirilgan erkin energiya o‘zgarishidir. Formula ferment miqdori o‘zgarmasa ham oqim nega o‘zgarishini ko‘rsatadi; u tasdiqlanmagan sonli ΔG°′ yoki muvozanat konstantasini bermaydi.
3.2. McGarry kashfiyoti: sintez va oksidlanish umumiy signal ishlatadi
1977-yilda McGarry, Mannaerts va Foster malonil-CoA kalamush jigari preparatlarida uzun zanjirli olein kislotasidan keton tanachalari hosil bo‘lishini bosishini, ammo oktanoatdan hosil bo‘lishini bosmasligini ko‘rsatdi. Mualliflar tormozlanish nuqtasini birinchi karnitinatsiltransferaza reaksiyasi bilan bog‘ladi. Keyingi ish ingibirlanishni CPT1 da joylashtirdi. Haqiqiy eksperimental ketma-ketlikni saqlash muhim: bu natijalar odamda ovqatdan keyin «yog‘lar to‘liq o‘chishi»ning klinik sinovi bo‘lmagan.
Malonil-CoA atsetil-CoA karboksillanishida hosil bo‘ladi. Atsetil-CoA + HCO₃⁻ + ATP → malonil-CoA + ADP + Pᵢ reaksiyasi uglerod manbai, bikarbonat va energiya sarfini birlashtiradi; uni atsetil-CoA-karboksilaza ACC katalizlaydi. Lipogenezda malonil guruhlari yog‘ kislotalari sintazasi FASN yig‘ayotgan zanjirni ketma-ket uzaytiradi. Bir vaqtda malonil-CoA uzun zanjirli substratlarning mitoxondrial oksidlanishga kirishini kamaytiradi.
Palmitat sintezida FASN bitta boshlang‘ich atsetil guruhi, yettita malonil guruhi va 14 NADPH ishlatadi. Yettita ATP avval ACC fermenti orqali yettita malonil-CoA hosil qilishga sarflanadi, shuning uchun bu xarajatni yana FASN ning o‘ziga yuklash noto‘g‘ri. Bunday ketma-ketlik bir zanjirning bir vaqtdagi jadal sintezi va parchalanishi nega energetik qimmat bo‘lishini tushuntiradi. Malonil-CoA boshqaruvi bu ziddiyatni kamaytiradi, lekin butun hujayrada lipogenez va oksidlanishning birga mavjudligiga mutlaq taqiq qo‘ymaydi.
Ovqat tushganidan keyin insulin va nutrient signallari odatda lipogen jarayonlarni qo‘llab, CPT1 tormozlanishini kuchaytirishi mumkin. Ochlik va yuklamada yog‘ kislotalari yetkazilishi, ACC faolligi va energetik holat o‘zgarib, yog‘larning ko‘proq ishlatilishiga yordam beradi. Bu tendensiyalarni elektr kalitining butunlay bir-birini inkor qiluvchi ikki holati sifatida tasvirlamaslik kerak. Turli to‘qimalar bir vaqtda turli substrat aralashmalarini oksidlaydi, mahalliy oqim esa ko‘plab cheklovlarga bog‘liq.
3.3. Boshqaruv domeni va membrana ta’siri
CPT1A ning N-uch qismi oqsilning qolgan qismi va membrana muhiti bilan o‘zaro ta’sir orqali malonil-CoA ga sezgirlikka ta’sir qiladi. Boshqaruv peptidining YMR tadqiqoti Nα va Nβ holatlarini aniqlagan; to‘liq oqsil mutagenezi ular ingibirlanish bilan turlicha bog‘lanadigan modelni qo‘llagan. Bu konformatsion boshqaruvning muhim natijasi, ammo yopiq karnitin tunnelining tayyor atom surati emas. Mualliflar peptid haqidagi eksperimental ma’lumot va butun ferment domenlarining modellashtirilgan yo‘nalishini bevosita farqlagan.
Tuzilmalarni taqqoslashda aynan qaysi oqsil o‘rganilganini hisobga olish zarur. 2M76 yozuvi odam CPT1C sining boshqaruv domeniga tegishli, CPT1A ning Nβ holati uchun esa 2LE3 muhokama qilinadi. Bu farq muhim, chunki ikki oqsilning vazifalari o‘zaro almashtirilmaydi. Shu sababli allosteriya rasmi tasdiqlanmagan atom kontaktlarini belgilamasdan isbotlangan topologiya va boshqaruv aloqasini ko‘rsatadi.
CPT1A ning malonil-CoA ga sezgirligi haqiqatan tashqi membrananing lipid xususiyatlari va egriligi bilan bog‘liq. Biroq bundan xolesterinning har qanday ortishi, mitoxondriyalar bo‘linishi yoki qo‘shilishi doimo oksidlanishni bitta yo‘nalishda o‘zgartiradi degan oddiy qoida chiqmaydi. Butun organella darajasida kontakt joylar, oqsillar taqsimlanishi, nafas funksiyasi va substrat mavjudligi bir vaqtda o‘zgaradi. Shu sababli bo‘linish va qo‘shilishni organella holati bilan birga ko‘rib, mitoxondriya shakli bilan CPT1 faolligi orasidagi universal bevosita bog‘lanishdan qochish kerak.
Kardiolipin oksidlanishi mavzusini CPT1 oligomerlari haqidagi farazlardan alohida saqlash zarur. Membrana lipidlari shikastlanishi mitoxondrial funksiyani buzishi mumkin, ammo CPT1 trimerlari va geksamerlari parchalanishi haqidagi muayyan da’vo o‘z eksperimental tasdig‘ini talab qiladi. Keyingi β-oksidlanishning ayrim fermentlari uchun kardiolipin aloqasi bevosita o‘rganilgan: VLCAD ning muayyan lizinlari atsillanishi membranaga bog‘lanishni o‘zgartirgan, SIRT3 va SIRT5 esa uni tiklay olgan. Bu misol CPT1 haqidagi ma’lumotni boshqa oqsil ma’lumoti bilan almashtirmasdan membrana muhitining ahamiyatini tasdiqlaydi.
4. Oksidlanishning tezkor va uzoq muddatli boshqarilishi
4.1. AMPK: energiya almashinuvi signalga aylanadi
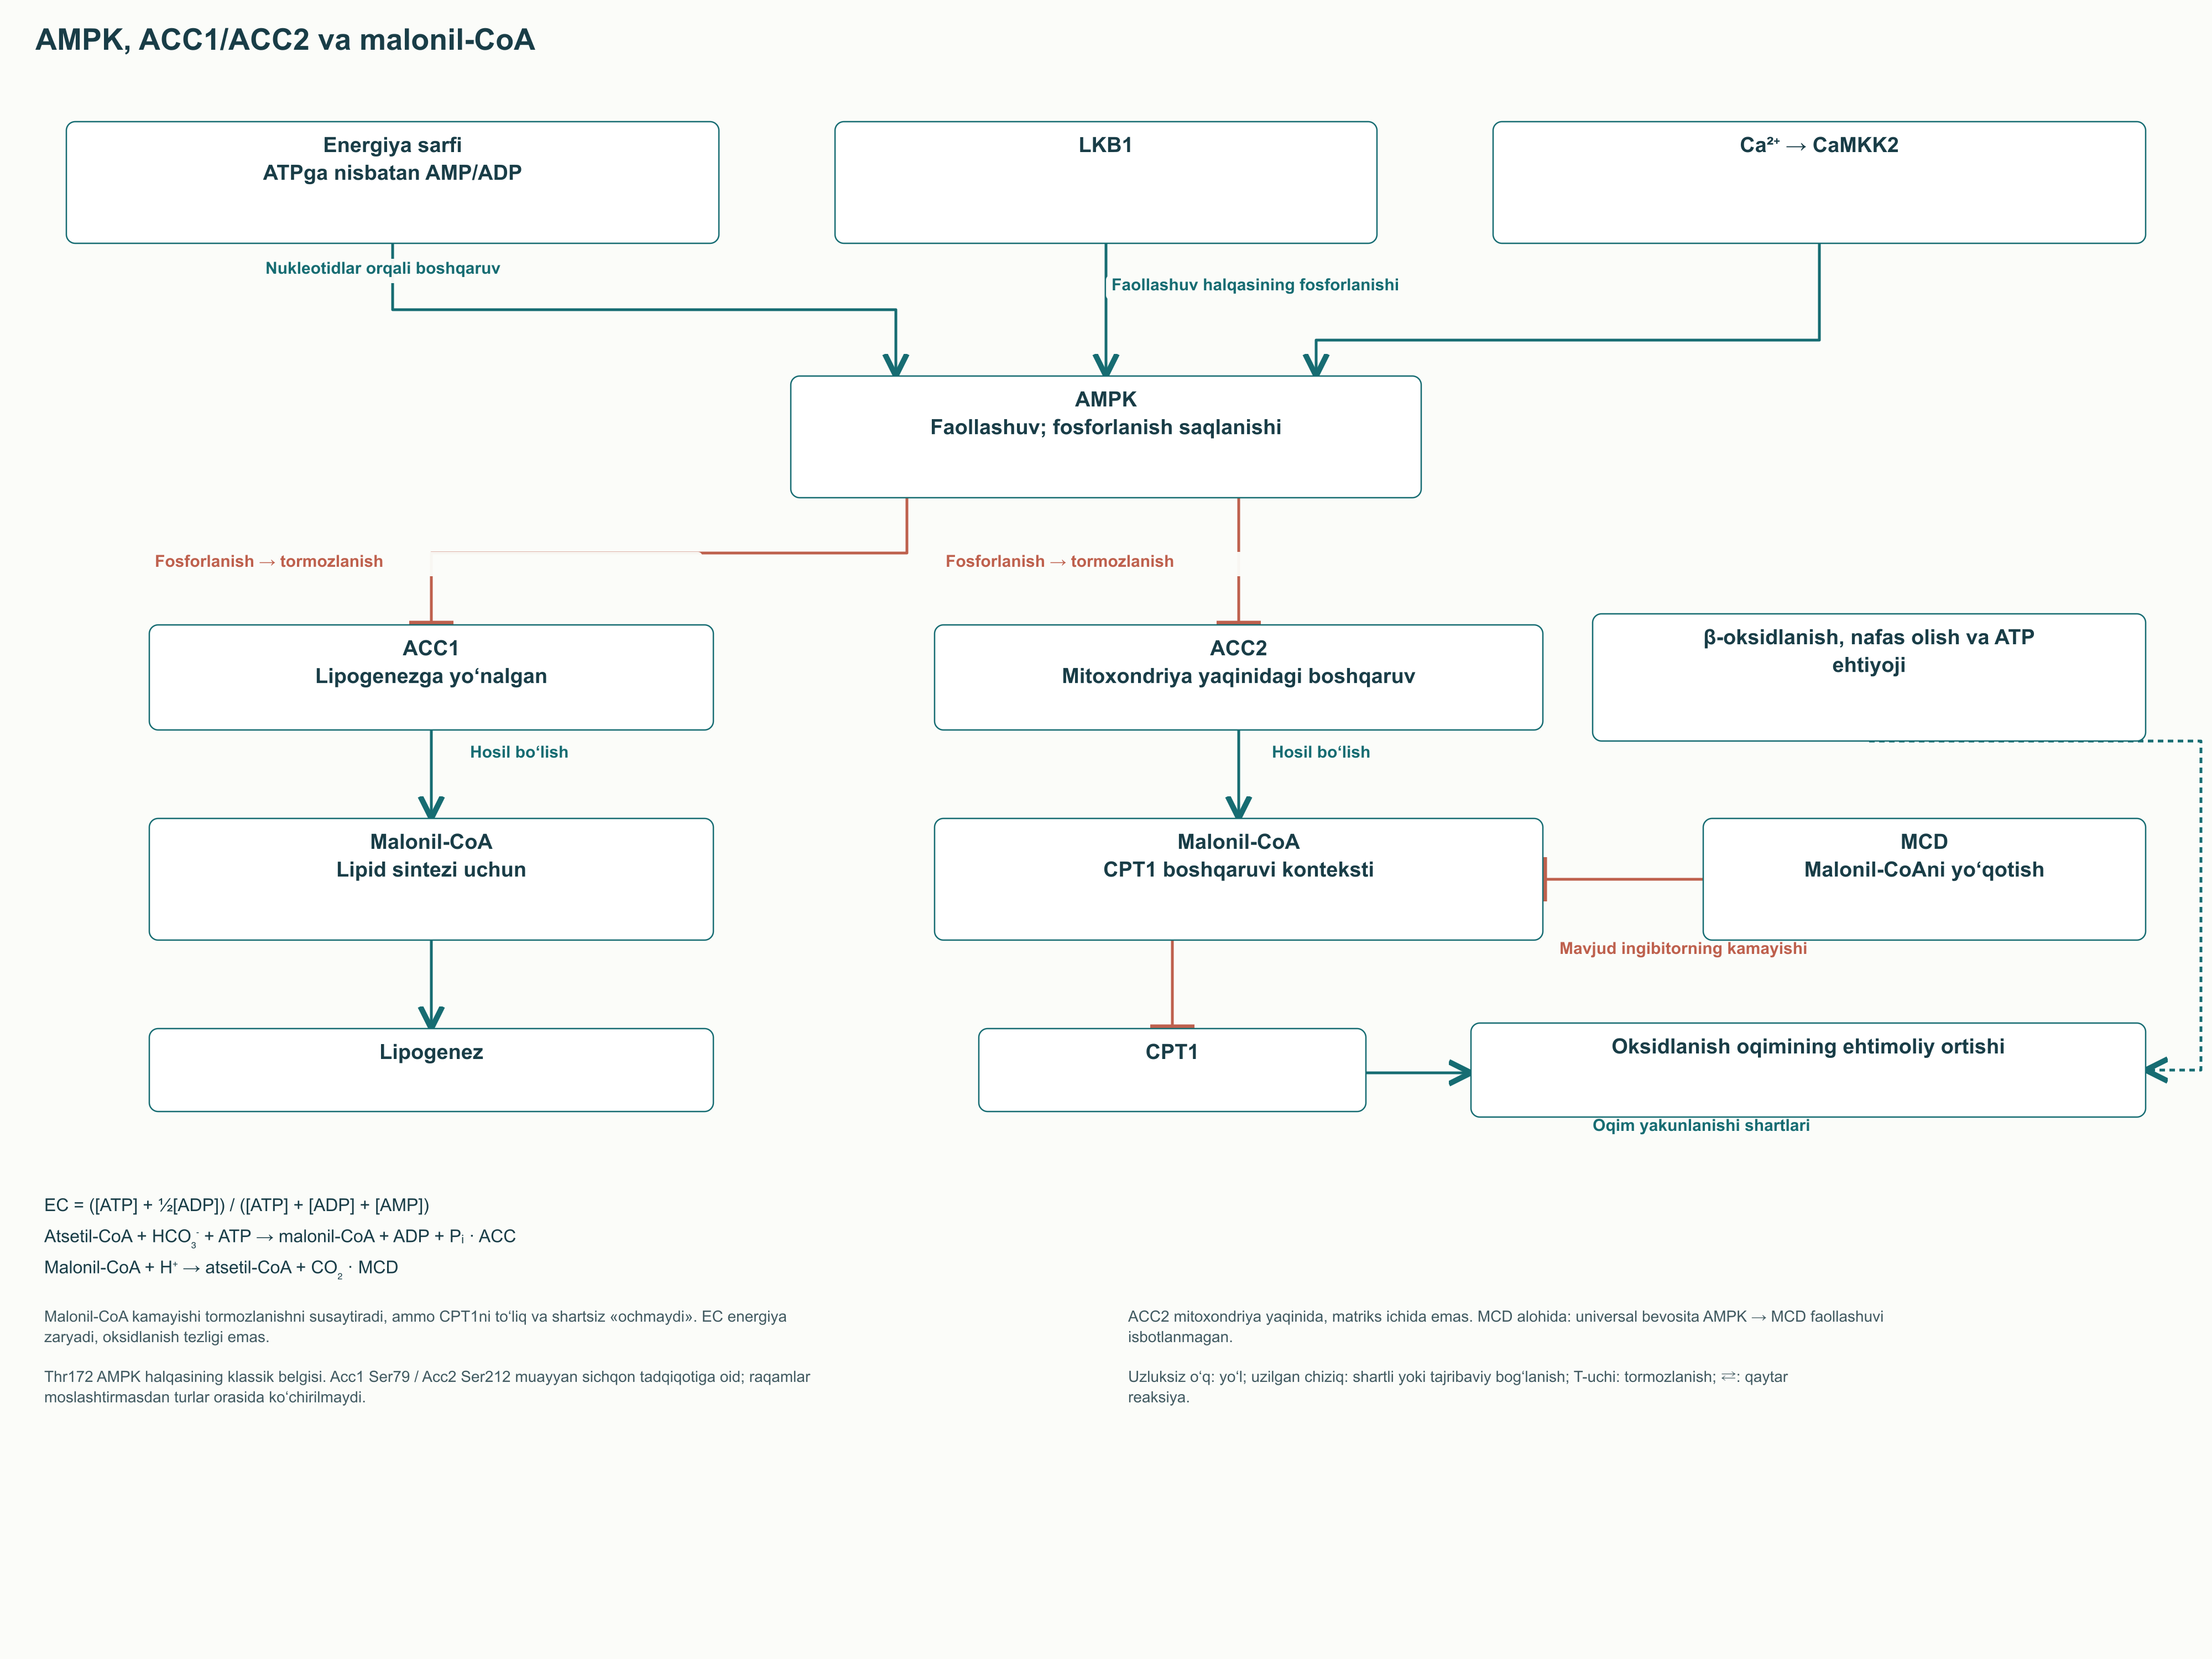
AMPK katalitik α-subbirlik va boshqaruvchi β- hamda γ-subbirliklardan iborat kompleksdir. Ularning turli izoformalari to‘qimada ifodalanishi va boshqarilishi farqli kombinatsiyalar hosil qiladi. ATP ga nisbatan AMP va ADP ortishi kompleks faollashishi va faollashtiruvchi halqa fosforlanishi saqlanishiga yordam beradi. AMPK faqat bitta AMP konsentratsiyasini o‘lchamaydi: u nukleotid signallarini yuqoridagi kinazalar faolligi va boshqa hujayra sharoitlari bilan birlashtiradi.
Muhim faollashuv nuqtasi α-subbirlikdagi Thr172 dir. Uning fosforlanishi LKB1 bilan bog‘liq, kalsiy signali esa CaMKK2 ni jalb qilishi mumkin. AMP kompleksni allosterik faollashtira oladi, AMP va ADP esa faollashtiruvchi fosforlanishni olib tashlanishdan himoya qilishga yordam beradi. Bunday tashkil topish energiya sarfiga ham, qisqarish va hujayra faolligi o‘zgarishlarini kuzatuvchi signallarga ham javob berishga imkon beradi.
Adenilat jamlanmasining umumiy holatini energetik zaryad ifodalaydi: EC = ([ATP] + ½[ADP]) / ([ATP] + [ADP] + [AMP]). Ifoda adenin nukleotidlarining mavjud yuqori energetik holatlari ulushini tasvirlaydi; bu AMPK faolligining bevosita tenglamasi emas. Umumiy jamlanma o‘zgarmasa, ATP ning ADP va AMP ga aylanishi EC ni pasaytiradi. Hujayra ichidagi mahalliy konsentratsiyalar va almashinuv kinetikasi to‘qima gomogenatida o‘lchangan o‘rtachalardan farqlanishi mumkin.
AMPK ning asosiy natijalaridan biri fosforlanish orqali ACC ni ingibirlashdir. Malonil-CoA hosil bo‘lishi kamayishi lipogen oqimni pasaytirib, CPT1 tormozlanishini susaytirishi mumkin. Fullerton va hamkasblari ACC1 va ACC2 ning asosiy fosforlanish nuqtalari alaninga almashtirilgan sichqonlarni o‘rganib, lipid almashinuvi buzilishlari va metforminga javob o‘zgarishini ko‘rsatdi. Bu natijalar AMPK–ACC o‘qining sababiy rolini tasdiqlaydi, ammo u har faollashganida CPT1 to‘liq ochilishini anglatmaydi.
Fosforlanish nuqtalari raqamlari bilan birga tur va ishlatilgan ketma-ketlik ko‘rsatilishi kerak. Keltirilgan sichqon modelida ACC1 Ser79 va ACC2 Ser212 haqida gap bor; boshqa turdagi nuqtalar raqami mos ketma-ketlik orqali aniqlanadi. Konseptual rasmda «ACC1/ACC2 fosforlanishi» va «malonil-CoA kamayishi» yorliqlari yetarli. Qoldiqlarning batafsil xaritasi faqat muayyan birlamchi tadqiqot muhokamasida o‘rinli.
SIRT1 muayyan eksperimental tizimlarda atsetillanish boshqaruvini shu o‘q bilan bog‘laydi. Lan va hamkasblari ishida LKB1 atsetillanishi o‘zgarishi uning joylashuvi, STRAD bilan o‘zaro ta’siri va AMPK faolligi o‘zgarishi bilan birga kechgan. Bu energetik va posttranslyatsion signallarni muvofiqlashtirishning yana bir yo‘lini tushuntiradi. Bu SIRT1 ta’sirining barcha to‘qima va hujayra holatlarida bir xil yo‘nalishini belgilamaydi.
4.2. ACC1 va ACC2: turli urg‘ular, bitta kimyoviy reaksiya
ACC1 va ACC2 bir xil atsetil-CoA karboksillanishini katalizlaydi, lekin tashkil topishi va to‘qimadagi roli farqlanadi. ACC1 yog‘ kislotalari sintezini malonil guruhlari bilan ta’minlashda ayniqsa muhim. ACC2 mitoxondriyalar yonida oksidlanish boshqarilishi bilan bog‘liq va joylashuvga ta’sir qiluvchi N-uch xususiyatlariga ega. Bu ajratish izoformalar orasida funksional qoplanish yo‘qligini anglatmaydigan foydali ishchi modeldir.
Abu-Elheiga va hamkasblarining 2001-yilgi ishida sichqonlarda ACC2 olib tashlanishi yog‘ kislotalari oksidlanishi kuchayishi va yog‘ to‘planishi kamayishi bilan kuzatilgan. Bu bemorlarda oksidlanishni farmakologik rag‘batlantirish xavfsizligi dalili emas, hayvondagi genetik tajriba edi. Oqsilni butun rivojlanish davomida yo‘q qilish, uning faolligini qisqa bostirish va ratsionni o‘zgartirish turli aralashuvlardir. Shuning uchun «ACC2 ingibirlanishi semizlikni davolaydi» xulosasi bitta model fenotipidangina kelib chiqmaydi.
Malonil-CoA darajasini faqat faol ACC miqdori belgilamaydi. Atsetil-CoA mavjudligi, allosterik signallar, sintezda malonil guruhlari sarflanishi va dekarboksilaza orqali olib tashlanishi ahamiyatli. Butun to‘qimadagi konsentratsiya tashqi membrana yonidagi konsentratsiyaga teng bo‘lishi shart emas. Jigar, mushak va neyron preparatlari orasidagi taqqoslashlarda ayniqsa ehtiyotkorlik kerak, chunki metabolit ularning har birida turli jarayonlarga xizmat qiladi.
4.3. MCD va posttranslyatsion atsillanish
MLYCD kodlaydigan malonil-CoA-dekarboksilaza MCD malonil-CoA + H⁺ → atsetil-CoA + CO₂ reaksiyasi bilan malonil-CoA jamlanmasini kamaytiradi. Shu orqali u CPT1 tormozlanishining bir qismini yengillashtirib, uglerodni atsetil-CoA ga qaytarishi mumkin. Uning kompartamentlar orasida taqsimlanishi muhim, chunki tashqi malonil-CoA konsentratsiyasi va matriks jarayonlari bir xil o‘lchov emas. MCD faolligining ortishi har bir to‘qimada bir xil natijani kafolatlamaydi.
Adabiyotda AMPK MCD ni bevosita fosforlab faollashtirishi mumkinligi muhokama qilingan. Biroq Sambandam va hamkasblari H9c2 hujayralarida bevosita fosforlanishni kuzatmagan; faollik o‘zgarishlari oqsil taqsimlanishi va ifodalanishi bilan bog‘liq bo‘lgan. Shu sababli «AMPK ACC ni o‘chiradi va darhol MCD ni yoqadi» paralleli kanonik bevosita ko‘rsatkich emas, shartli bo‘lib qolishi kerak. Rasm AMPK ning ACC ga bevosita ta’sirini ko‘rsatadi va MCD ni ingibitorni olib tashlashning mustaqil yo‘li sifatida beradi.
Malonil-CoA oqsil lizinlarining kovalent malonillanishi bilan ham bog‘liq. Malonil guruhi qo‘shilishi zaryadni o‘zgartiradi va muayyan oqsil qismiga ta’sir qilishi mumkin, ammo funksional ta’sir yo‘nalishi ferment va pozitsiyaga bog‘liq. Bu har bir malonillanish barcha energiya almashinuvini albatta bostiradi degani emas. Matriksdagi butun malonil-CoA jamlanmasini ham faqat toksik deb ta’riflamaslik kerak: kompartament atsil hosilalarining o‘z fiziologik vazifalari mavjud.
Du va hamkasblari SIRT5 ning NAD⁺-ga bog‘liq demalonilaza va desuksinilaza faolliklarini ko‘rsatdi. Boshqa eksperimental yo‘nalishda SIRT4 MCD ni deatsetillab ingibirlagan, bu sichqon lipid almashinuvi o‘zgarishlari bilan kuzatilgan. Demak, deatsetillanish doimo faollashishni anglatmaydi, turli sirtuinlar esa bitta universal «tozalash» vazifasini bajarmaydi. Bu ma’lumotlar posttranslyatsion boshqaruv mavzusini saqlab, barcha atsillangan fermentlarni boshqaradigan bitta kalit haqidagi soddalashtirilgan tasavvurni olib tashlaydi.
4.4. PPAR, PGC-1α va ferment apparatining moslashuvi
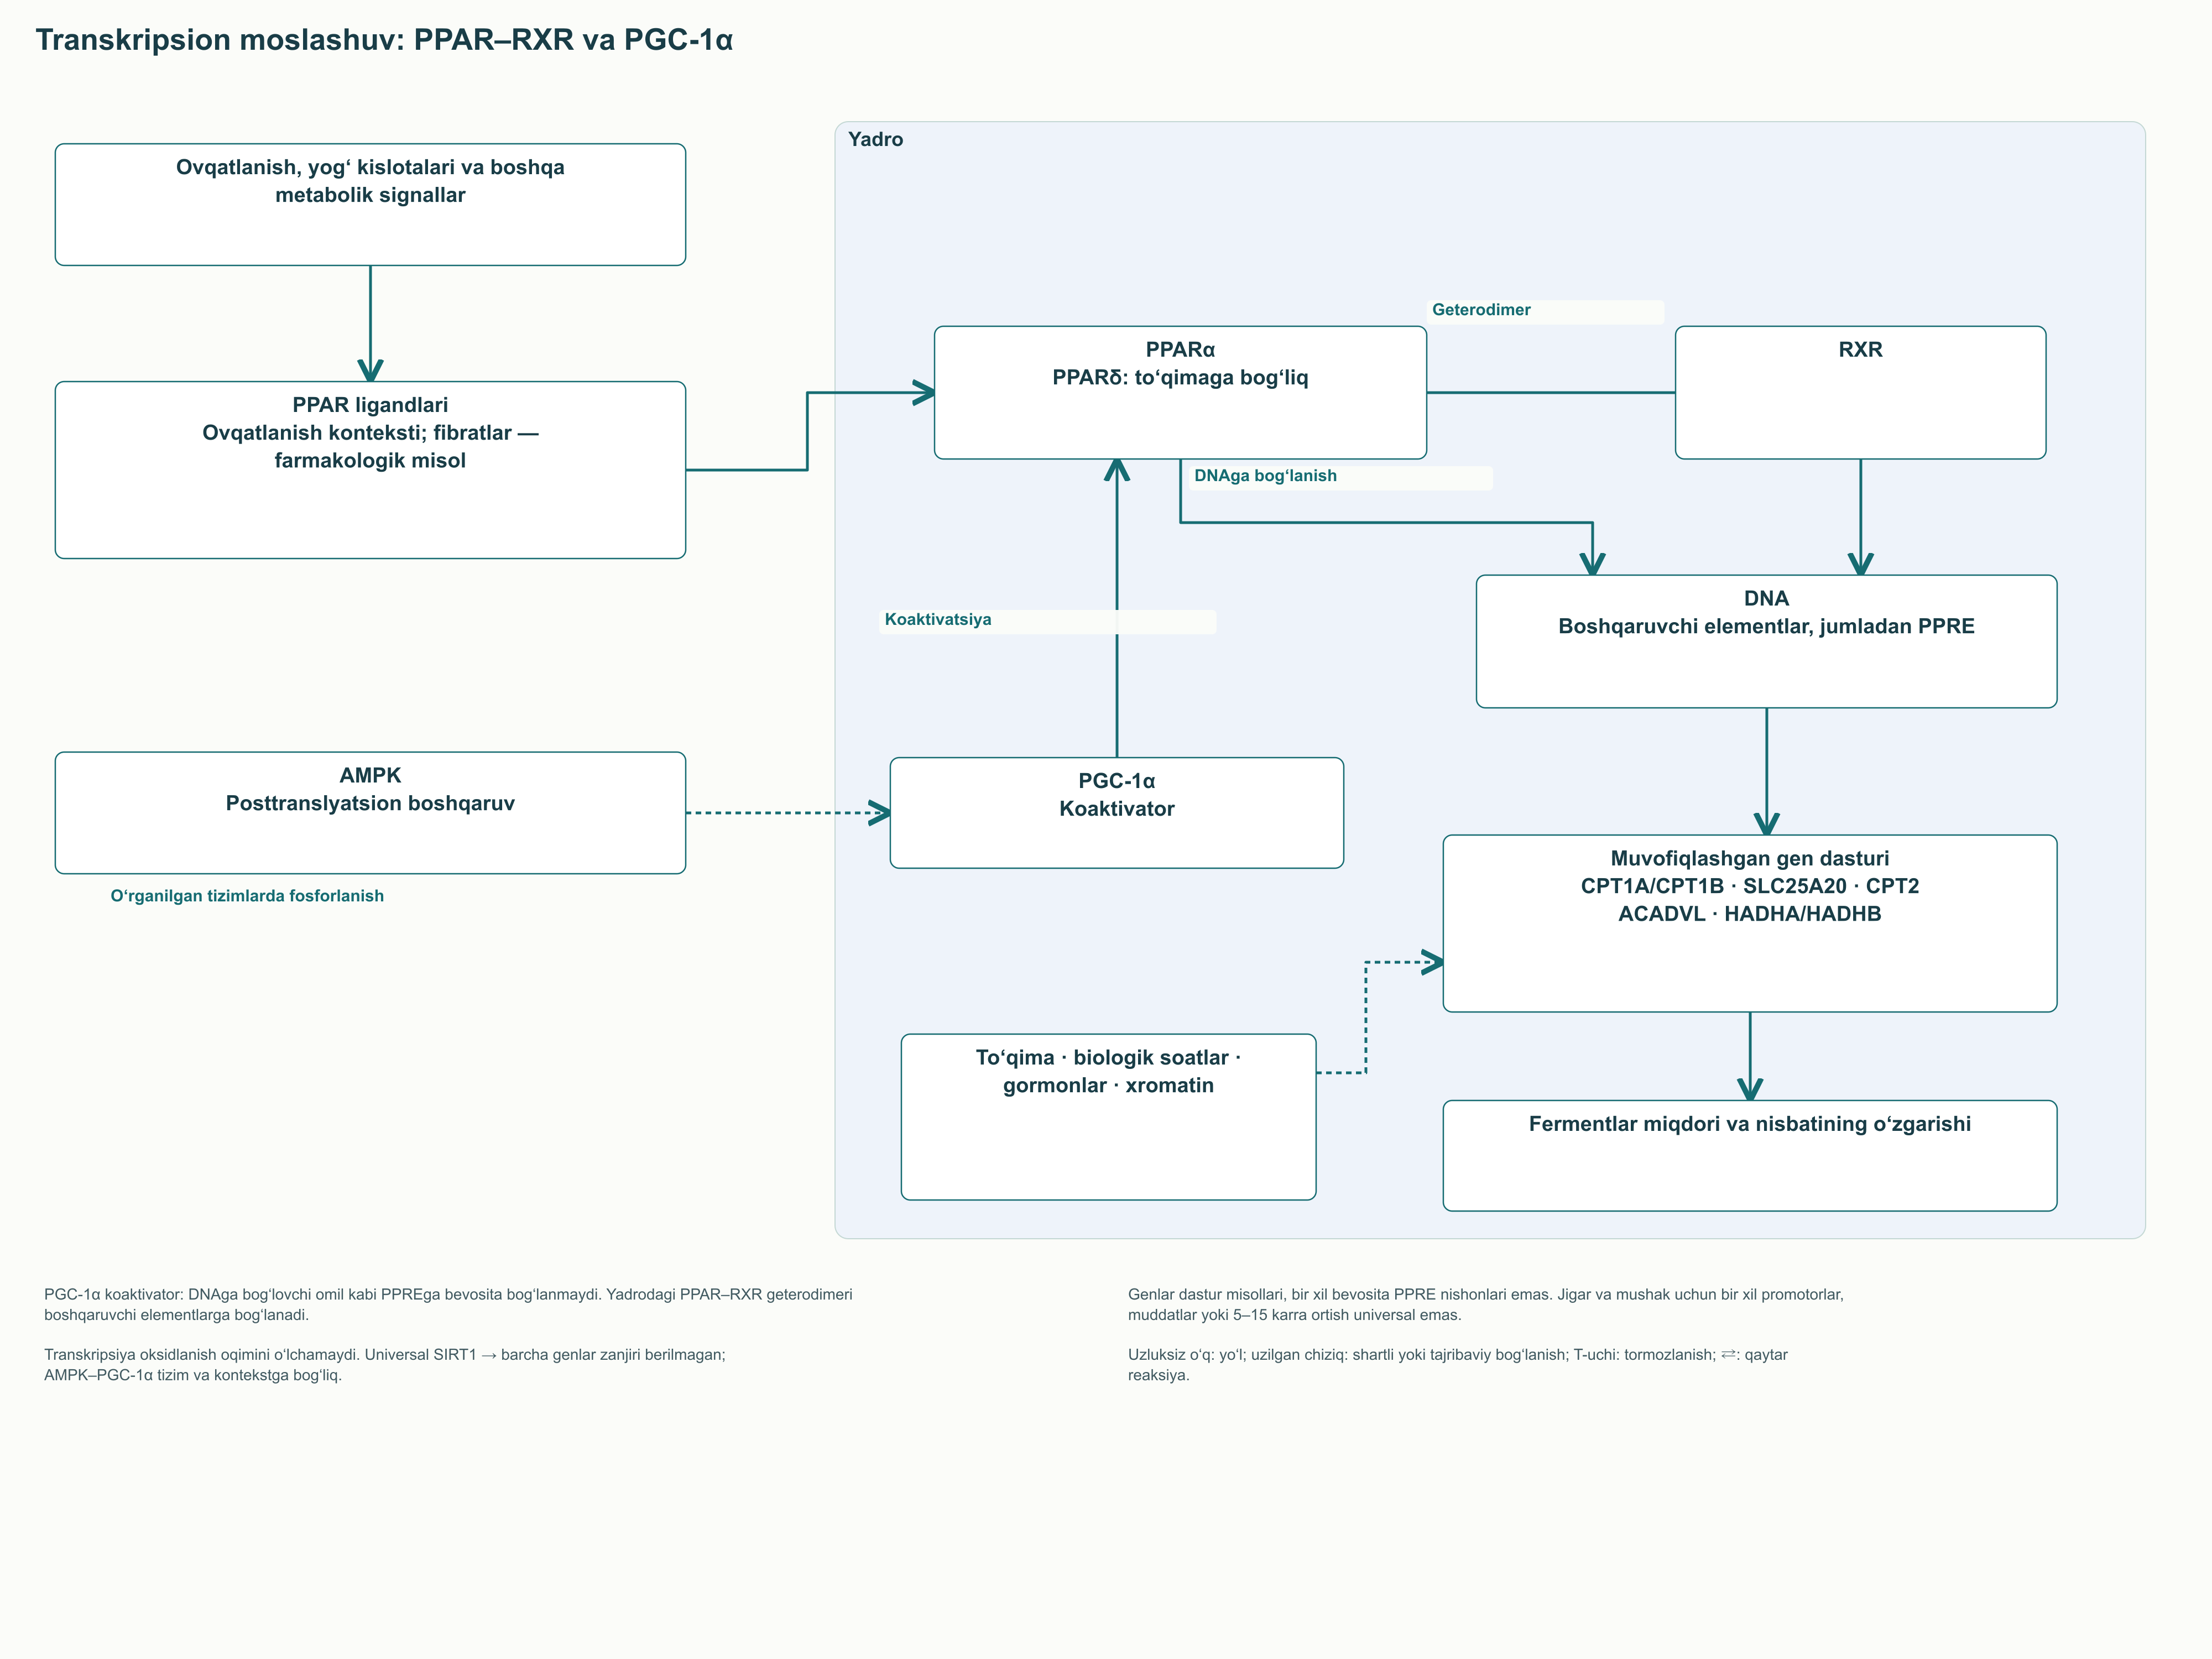
Tezkor boshqaruv mavjud oqsillar faolligini o‘zgartiradi, transkripsion moslashuv esa ularning miqdori va nisbatini qayta tashkil qiladi. Jigarda PPARα muhim; mushakning oksidlovchi dasturida PPARδ va boshqa omillar ham qatnashadi. PPAR lar RXR bilan o‘zaro ta’sirlashib, DNK boshqaruv elementlarini taniydi, biroq javob beradigan genlar to‘plami to‘qimaga bog‘liq. Erkin yog‘ kislotasi bu yerda yoqilg‘i ham, signal kontekstining bir qismi ham bo‘lishi mumkin.
Kersten va hamkasblari tajribalarida PPARα siz sichqonlar ochlikka yomon moslashgan: jigarda lipidlar to‘plangan, keton va glyukoza almashinuvi buzilgan. Bu natijalar faqat CPT1A ifodalanishi emas, muvofiqlashtirilgan oksidlanish dasturi ahamiyatini ko‘rsatadi. Dastur tashish fermentlari, β-oksidlanish fermentlari va qo‘shni almashinuv yo‘llarini qamraydi. Bitta transkript o‘zgarishi butun to‘qima moslashuvini takrorlaydi deb taxmin qilib bo‘lmaydi.
PGC-1α bir nechta transkripsion omil, jumladan PPAR va ERR bilan o‘zaro ta’sirlashuvchi koaktivator bo‘lib xizmat qiladi. U yog‘ kislotasi retseptori emas va mustaqil DNK-tanuvchi omil sifatida PPRE ga bog‘lanmaydi. Jäger va hamkasblari eksperimental mushak tizimlarida AMPK orqali PGC-1α ning bevosita fosforlanishini va gen dasturining bir qismi ushbu koaktivatorga bog‘liqligini ko‘rsatdi. Deatsetillanish, xromatin komplekslarini jalb etish va ifodalanish o‘zgarishi bilan birga bu energetik sensorni uzoq muddatli moslashuvga bog‘laydi.
SIRT3 mitoxondrial posttranslyatsion boshqaruv misolini beradi. Hirschey va hamkasblari SIRT3 siz sichqonlarda LCAD atsetillanishi va yog‘ kislotalari oksidlanishi o‘zgarishini o‘rgandi. Biroq LCAD ahamiyati turlar orasida farqlanadi, shu sababli sichqon modelini tuzatishsiz odamdagi har bir uzun zanjirning yetakchi fermenti tavsifiga aylantirib bo‘lmaydi. Sirtuinlar va oksidlanish aloqasini umumiy «mitoxondriyalarni kuchaytirish» va’dasi orqali emas, muayyan oqsil va model orqali tushuntirish kerak.
Sirkadiyal soatlar, ratsion, gormonlar va korepressorlar ham almashinuv dasturlariga ta’sir qiladi. CPT1A doimo «uyg‘oqlik boshida» cho‘qqiga chiqadi degan da’vo tur, to‘qima va yoritish rejimi ma’lumotini talab qiladi. Xuddi shunday, fibrat ta’sirida ifodalanishning necha baravar ortishi preparat, doza va tajriba kontekstiga bog‘liq. Bu yo‘nalishlar amalda moslashuvni tushuntirishga yordam beradi, ammo qo‘shimcha qabul vaqtini yoki oldindan aytiladigan klinik javobni belgilamaydi.
5. Atsil guruhi matriksga kirgach nimalar bo‘ladi
5.1. β-oksidlanishning to‘rt reaksiyasi
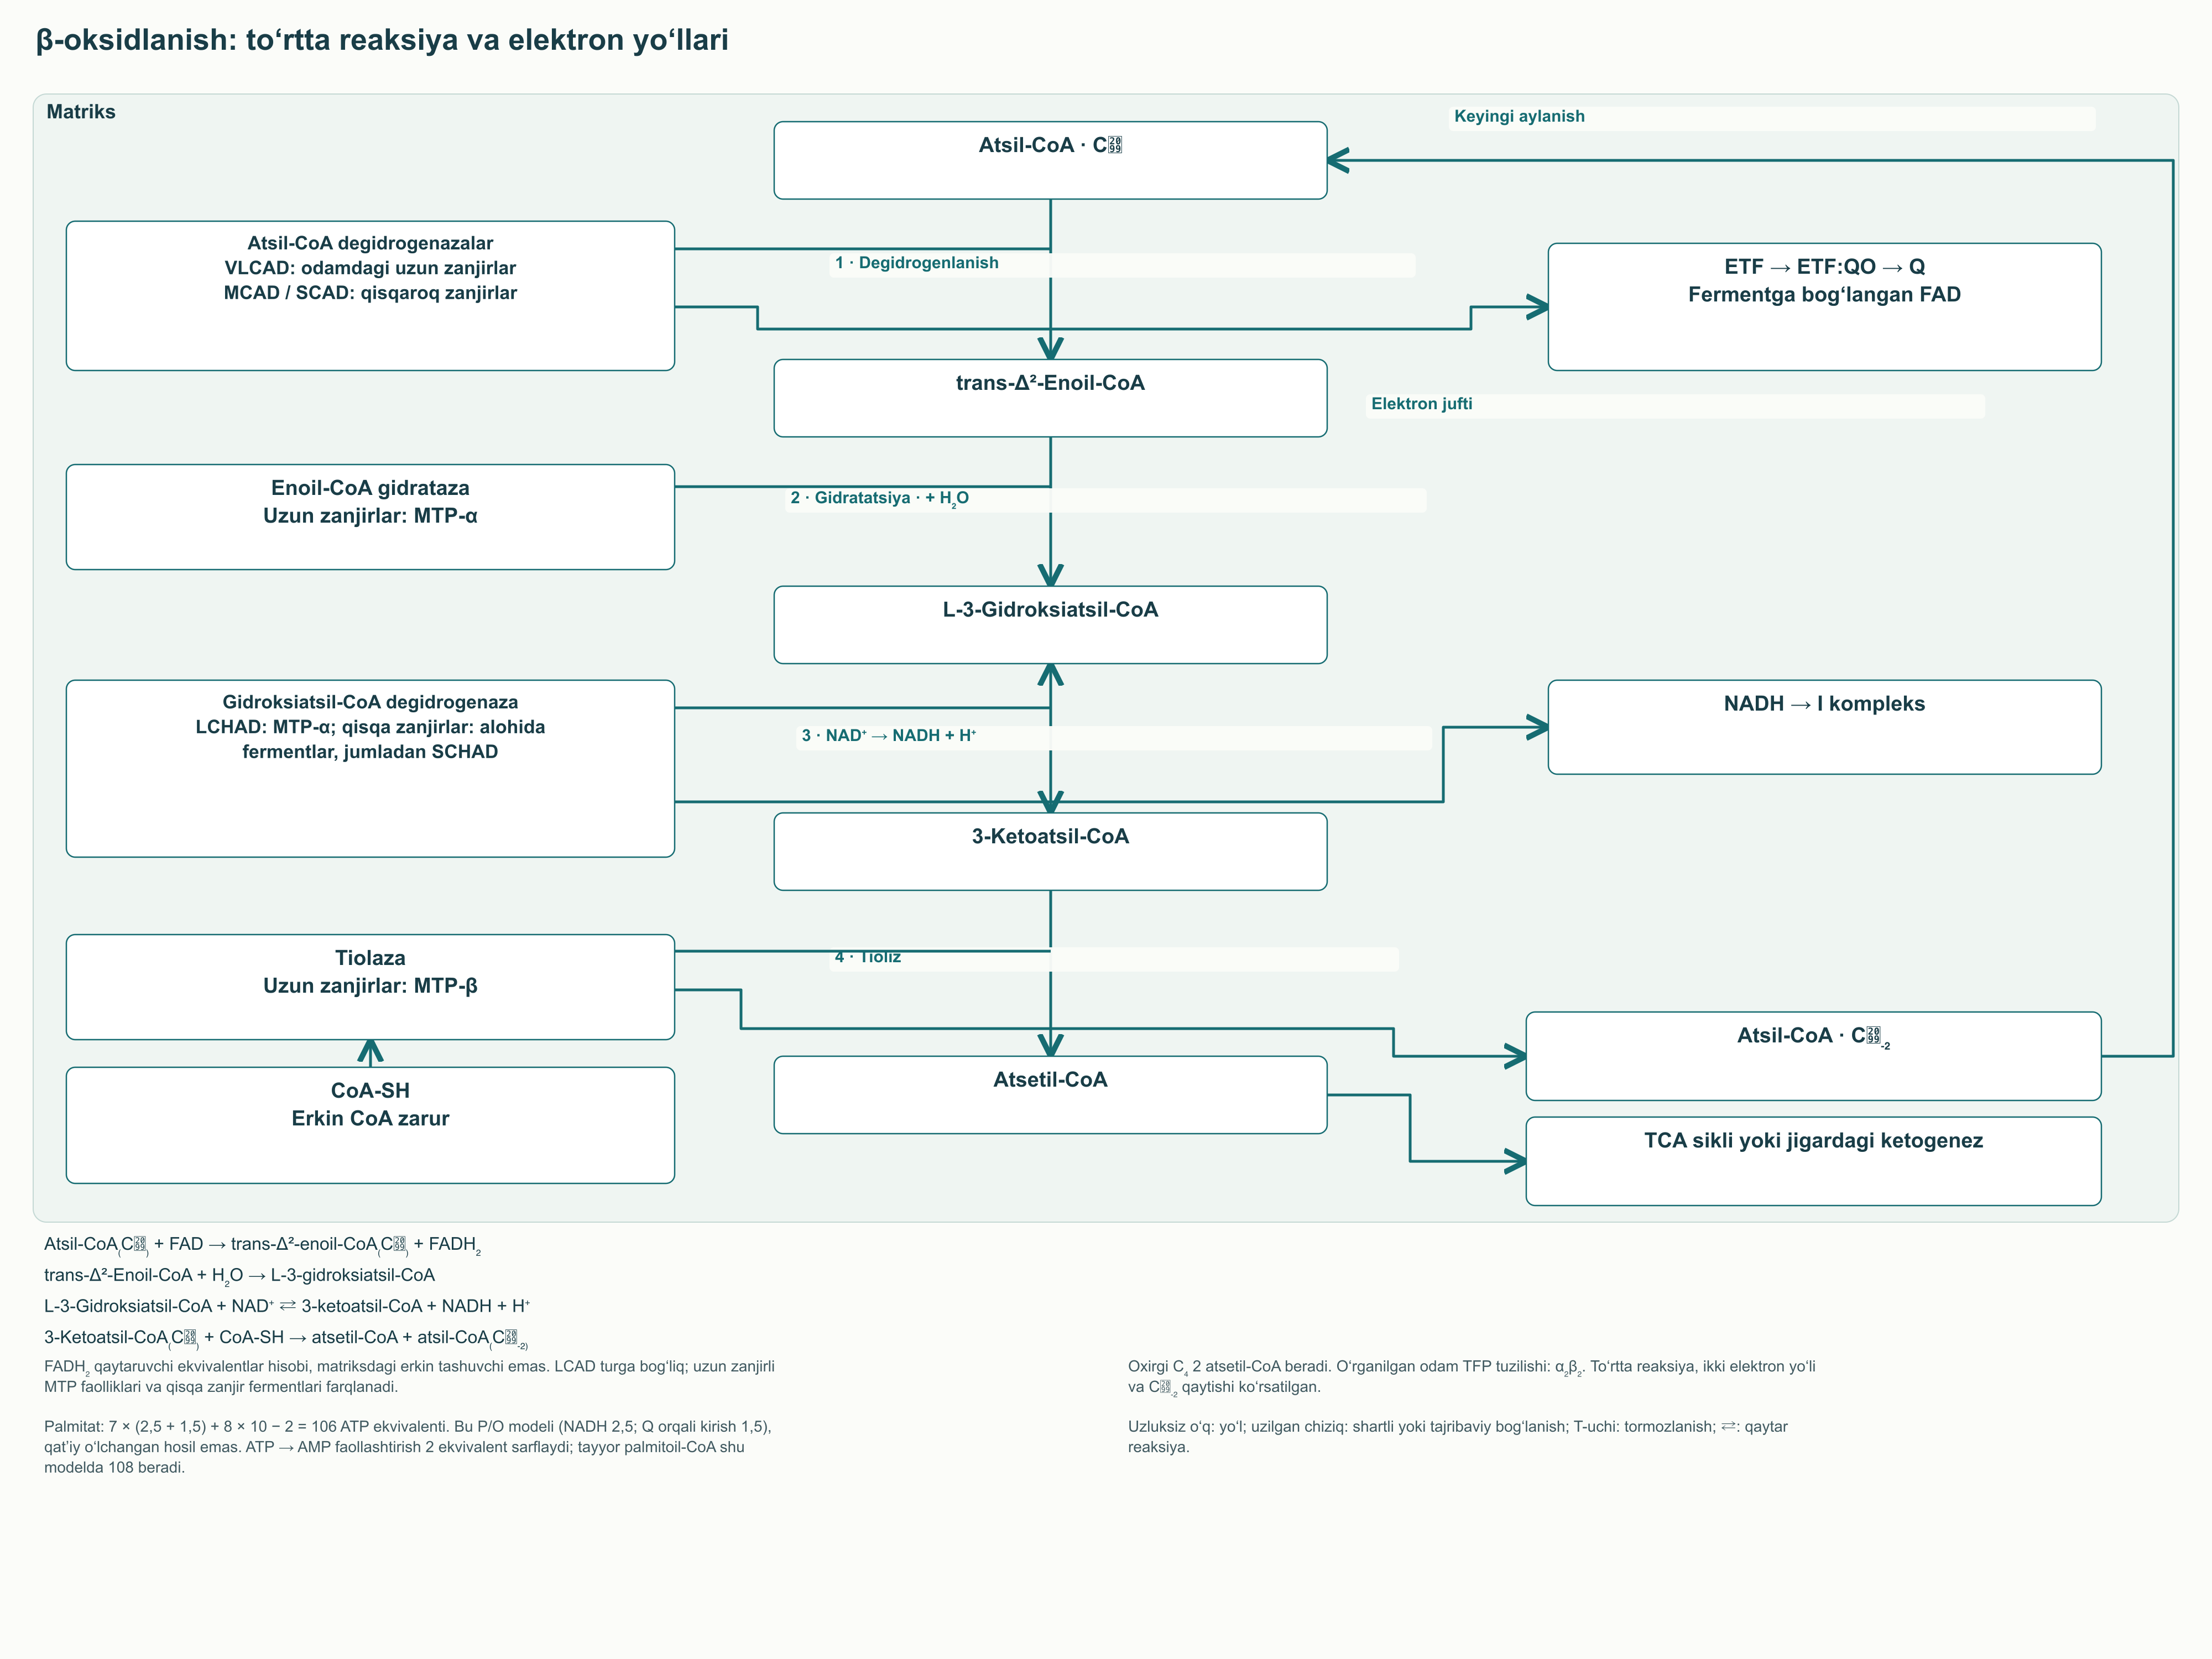
β-oksidlanish atsil zanjirining karboksil uchi yonidagi qismni ketma-ket o‘zgartiradi. Nom β-uglerodga, karbonil uglerodidan boshlanadigan odatiy biokimyoviy raqamlashdagi uchinchi atomga tegishli. Bitta sikl degidrogenlanish, gidratlanish, ikkinchi degidrogenlanish va tiolizdan iborat. Zanjir odatda ikkita uglerod atomiga qisqaradi, bunda atsetil-CoA hosil bo‘lib, nafas zanjiri uchun elektronlar ajraladi.
Birinchi reaksiya: atsil-CoA₍Cₙ₎ + FAD → trans-Δ²-enoil-CoA₍Cₙ₎ + FADH₂. Uni atsil-CoA-degidrogenaza bajaradi, FAD esa fermentga bog‘langan kofaktordir. O‘quv balansidagi FADH₂ nafas zanjiriga erkin suzadigan molekulani emas, qaytaruvchi ekvivalentlarni hisoblaydi. Elektronlar ETF va ETF:Q-oksidoreduktaza orqali ubixinon jamlanmasiga o‘tadi.
Ikkinchi reaksiya: trans-Δ²-enoil-CoA + H₂O → L-3-gidroksiatsil-CoA. Gidrataza qo‘sh bog‘ga suvni muayyan stereokimyo bilan qo‘shib, keyingi fermentga mos L-izomerni beradi. Uchinchi bosqich: L-3-gidroksiatsil-CoA + NAD⁺ ⇄ 3-ketoatsil-CoA + NADH + H⁺. Hosil bo‘lgan NADH I kompleks orqali elektron beradi, demak ikki qaytaruvchi bosqich nafas zanjiriga turli yo‘llardan kiradi.
To‘rtinchi reaksiya: 3-ketoatsil-CoA₍Cₙ₎ + CoA-SH → atsetil-CoA + atsil-CoA₍Cₙ₋₂₎. Tioliz erkin CoA-SH dan foydalanadi, tiolazaning odatiy kimyosi esa katalitik sistein qatnashadigan kovalent atsil-ferment oraliq birikmasini o‘z ichiga oladi. Qisqargan zanjir yangi siklga kirishi, atsetil-CoA esa trikarboksil kislotalar sikli yoki boshqa yo‘llarga, jumladan jigar ketogeneziga yo‘nalishi mumkin. Oxirgi siklda to‘rt uglerodli zanjirdan ikkita atsetil-CoA chiqadi.
Bosqich
O‘zgarish
Katalitik tizim
Energiya almashinuvi bilan aloqa
1
Atsil-CoA → trans-Δ²-enoil-CoA
Atsil-CoA-degidrogenazalar
Elektronlar ETF va ETF:QO orqali Q ga o‘tadi
2
Enoil-CoA → L-3-gidroksiatsil-CoA
Enoil-CoA-gidrataza
Suv qo‘shilishi
3
Gidroksiatsil-CoA → 3-ketoatsil-CoA
Gidroksiatsil-CoA-degidrogenaza
I kompleks uchun NADH
4
Ketoatsil-CoA → atsetil-CoA + qisqargan atsil-CoA
3-ketoatsil-CoA-tiolaza
Erkin CoA-SH sarfi va ikki uglerodli qism ajralishi
5.2. Zanjir uzunligi, uch funksiyali oqsil va reaksiyalar bog‘liqligi
Degidrogenazalar oilalarining substrat diapazonlari qoplanadi. Odamda uzun zanjirli oksidlanishning boshlanishi uchun VLCAD ayniqsa muhim, MCAD va SCAD esa qisqaroq mahsulotlarga ishlaydi. Uglerod uzunligi diapazonlari yo‘l ko‘rsatadi, ammo undan tashqarida ferment umuman ishlamaydigan qat’iy chegara o‘rnatmaydi. Faqat kemiruvchilar bilan o‘xshashlikka qarab LCAD ni odamdagi uzun zanjirli β-oksidlanishning universal teng asosiy ishtirokchisi sifatida ko‘rsatmaslik kerak.
Uzun zanjirlarning keyingi uch faolligi mitoxondrial uch funksiyali oqsil, MTP yoki TFP da birlashgan. HADHA subbirligi gidrataza va uzun zanjirli gidroksiatsil-CoA-degidrogenaza faolligini, HADHB esa tiolaza faolligini tutadi. Fazoviy tashkil topish oraliq mahsulotlar membrana yonida uzatilishini yengillashtiradi. Zanjir qisqargan sari matriksning alohida eruvchan fermentlari ahamiyati ortadi.
Dastlabki matn MTP ni shartsiz α₄β₄-geterooktamer deb tasvirlagan. Biroq odam oqsilining strukturaviy tadqiqotlari, jumladan Xia va hamkasblari ishi, α₂β₂ funksional birlikni tasvirlab, boshqa oligomer holatlarni muhokama qiladi. Shu sababli reaksiya sxemasi α va β subbirlik vazifalarini bitta tasdiqlanmagan yig‘ilmani majburan belgilamasdan ko‘rsatishi kerak. Bu bog‘lanish mexanizmini saqlab, tavsifni zamonaviy birlamchi strukturaviy ma’lumotlarga mos qiladi.
Kislorod standart siklning to‘rt reaksiyasidan hech biriga bevosita kirmaydi. Shunga qaramay NAD⁺ va oksidlangan flavin kofaktori qayta tiklanishi nafas zanjiri elektronlarni olib ketishiga bog‘liq. Elektronlarning kislorodga yetarli o‘tishi bo‘lmasa, qaytaruvchi ekvivalentlar to‘planib, keyingi oqimni cheklaydi. Demak, matriksdagi substrat mavjudligi kislorod yetkazilishi va oksidlovchi fosforlanish cheklovlarini chetlab o‘tolmaydi.
5.3. To‘yinmagan, toq zanjirli va juda uzun zanjirli yog‘ kislotalari
To‘yinmagan yog‘ kislotalarida mavjud qo‘sh bog‘lar keyingi gidrataza reaksiyasiga har doim mos emas. Enoil-CoA-izomeraza ayrim oraliq konfiguratsiyalarni trans-Δ² shaklga aylantiradi. Ba’zi ko‘p to‘yinmagan substratlar qo‘shimcha NADPH-ga bog‘liq 2,4-dienoil-CoA-reduktaza talab qiladi. Bu aylanma reaksiyalar qaytaruvchi ekvivalentlar va energiya balansini o‘zgartiradi, shu sababli «har qo‘sh bog‘ uchun minus 1,5–2,5 ATP» degan yagona tuzatish noto‘g‘ri.
Masalan, birinchi degidrogenaza bosqichini chetlash ETF orqali mos elektron uzatilishini olib tashlaydi. Reduktaza kerak bo‘lsa, NADPH bilan qaytarilish xarajati qo‘shiladi. Muayyan yog‘ kislotasining yig‘indisini hisoblash uchun qo‘sh bog‘lar joyi va oraliq reaksiyalar ketma-ketligini bilish zarur. Palmitat hisobini barcha bosqichlar koeffitsiyentlarini bir xil qoldirib oleat yoki linoleatga ko‘chirib bo‘lmaydi.
Toq zanjirli substratda oxirgi uglerod qoldig‘i propionil-CoA bo‘ladi. Keyingi ketma-ketlik: propionil-CoA + HCO₃⁻ + ATP → D-metilmalonil-CoA + ADP + Pᵢ, keyin D-metilmalonil-CoA ⇄ L-metilmalonil-CoA → suksinil-CoA. Birinchi bosqich biotinga bog‘liq propionil-CoA-karboksilazani, oxirgisi esa B₁₂ vitamini shakli adenozilkobalaminli metilmalonil-CoA-mutazani talab qiladi. Shunday qilib, propionil qoldig‘ining aylanishi oddiy atsetil-CoA ajralishidan boshqa ferment va kofaktorlar to‘plamiga bog‘liq.
Suksinil-CoA trikarboksil kislotalar sikli oraliq moddalarini to‘ldirib, anaplerozda qatnashadi. Bu yo‘lga kirishning o‘zi oz miqdordagi oziq toq zanjirli yog‘ kislotalari oksaloatsetat tanqisligini tuzatadi yoki insulinga sezgirlikni yaxshilaydi degani emas. Umumiy oqim boshqa oraliq moddalar mavjudligi va ularning biosintez yo‘llariga chiqishiga bog‘liq. Biokimyoviy imkoniyat sut yog‘i yoki maxsus qo‘shimcha uchun davolash ko‘rsatmasini belgilamaydi.
Juda uzun zanjirlarning peroksisomal oksidlanishi boshqa energetik tashkil topishga ega. Boshlang‘ich bosqichda elektronlar mitoxondrial ETF yo‘liga kirmay, H₂O₂ hosil qilib kislorodga o‘tadi. Qisqargan mahsulotlar keyin mitoxondriyalar tomonidan, jumladan karnitin hosilalariga aylangach ishlatilishi mumkin. Bu kontekst CROT uchun ham muhim: karnitinoktanoiltransferaza asosan peroksisomalar bilan bog‘liq, shuning uchun dastlabki matnda uni CPT2 ning universal hamkori sifatida matriksga joylashtirish noto‘g‘ri edi.
5.4. Nega MTP nuqsonlari homiladorlikka ta’sir qilishi mumkin
LCHAD yoki MTP ning boshqa faolliklari yetishmovchiligi uzun zanjirli β-oksidlanish yakunlanishini buzadi. Bemorlarda gipoketotik gipoglikemiya, kardiomiopatiya va boshqa energiya yetishmasligi belgilari rivojlanishi mumkin. Alohida klinik bog‘lanish LCHAD funksiyasi buzilgan homilani ko‘tarayotgan onaga tegishli. Ibdah va hamkasblarining birlamchi tadqiqotida homiladagi yog‘ kislotalari oksidlanish nuqsonlari onaning homiladorlikdagi og‘ir jigar kasalligi bilan bog‘langan.
Homiladorlikning o‘tkir yog‘li jigari va HELLP sindromini homilaning har qanday HADHA nuqsonining muqarrar oqibati deb qaramaslik kerak. Bunday akusherlik holatlarining hammasi MTP bilan tushuntirilmaydi, kasallangan homilali har bir homiladorlik ham bir xil tugamaydi. Gidroksillangan lipid metabolitlari to‘planishi va almashinuvi mexanizmning bir qismi sifatida qaraladi, ammo barcha patologiyani bitta atsilkarnitinga keltirib bo‘lmaydi. Amaliyotda shoshilinch holatni tanish va keyin oilani maxsus baholashni tashkil qilish universal «mitoxondrial» protokol tayinlashga urinishdan muhimroq.
6. Energetik balans: palmitatdan hisoblangan 106 ATP gacha
6.1. Yettita siklning stexiometriyasi
Palmitat 16 uglerod atomi tutadi va qo‘sh bog‘lari yo‘q. Uning atsil zanjirini sakkizta atsetil-CoA ga to‘liq aylantirish uchun yettita β-oksidlanish sikli kerak: oxirgi C4 parchalanishi bir vaqtning o‘zida ikkita C2 qismini beradi. Umuman, to‘yingan juft zanjirli Cₙ substrat uchun sikllar soni n/2 − 1, atsetil-CoA soni esa n/2. Bu munosabatlar uglerod balansini tasvirlaydi, muayyan to‘qimadagi reaksiya tezligini emas.
Palmitoil-CoA uchun hisob yig‘indisi: palmitoil-CoA + 7 CoA-SH + 7 FAD + 7 NAD⁺ + 7 H₂O → 8 atsetil-CoA + 7 FADH₂ + 7 NADH + 7 H⁺. Bitta sikl tavsifidagi kabi FAD/FADH₂ bog‘langan kofaktorlar orqali qaytaruvchi ekvivalentlar almashinuvini bildiradi. Keyin atsetil-CoA trikarboksil kislotalar siklida oksidlanib, qo‘shimcha qaytarilgan tashuvchilarni hosil qiladi. CPT1 va karnitin tashilishi bu balansda alohida ATP manbalari emas.
6.2. P/O biologik doimiy emas, hisob farazidir
P/O nisbati ATP sintezini elektronlarning kislorodga uzatilishi bilan bog‘laydi; an’anaviy yozuvda O kislorod atomi, ya’ni yarim O₂ molekulasini bildiradi. O‘quv hisoblarida ko‘pincha NADH uchun 2,5 ATP ekvivalenti, I kompleksni chetlab Q jamlanmasiga kirgan elektronlar uchun 1,5 olinadi. Unda yettita NADH 17,5 ATP, yettita flavin qaytaruvchi ekvivalenti esa 10,5 beradi. β-oksidlanishning jami hissasi 28 ATP ekvivalenti.
Trikarboksil kislotalar siklida bitta atsetil-CoA 3 NADH, bitta flavin qaytaruvchi ekvivalenti va bitta GTP beradi. Tanlangan P/O da bu 3 × 2,5 + 1 × 1,5 + 1 = 10 ATP ekvivalenti. Sakkizta atsetil-CoA 80 beradi, umumiy yig‘indidan erkin palmitatni faollashtirishga ketgan ikki ekvivalent ayiriladi. Natijaviy ifoda: ATP₍sof₎ = 7 × (2,5 + 1,5) + 8 × 10 − 2 = 106.
Xuddi shu farazlardagi foydali umumiy ifoda: ATP₍sof,Cₙ₎ = (n/2 − 1) × 4 + (n/2) × 10 − 2 = 7n − 6. U qabul qilingan o‘quv bog‘lanishi sharoitida to‘liq mitoxondrial ishlovdan o‘tadigan erkin to‘yingan juft zanjirli yog‘ kislotasiga tegishli. Hisob allaqachon faollashtirilgan palmitoil-CoA dan boshlansa, yo‘lning ayni qismida faollashuv xarajati ayirilmaydi va 108 chiqadi. Atsetil-CoA ning bir qismi keton tanachalari yoki sintezga yo‘nalsa, bitta hujayradagi to‘liq oksidlanish sharti bajarilmaydi.
ATP-sintaza stexiometriyasi tadqiqotlari, jumladan Watt va hamkasblari ishidagi c₈-halqa tuzilmasi, butun sonli hosilni nega tirik mitoxondriyaning o‘zgarmas xususiyati deb bo‘lmasligini ko‘rsatadi. Bog‘lanish, proton sizishi, fosfat va nukleotid tashilishi xarajat va sintezning haqiqiy nisbatini o‘zgartiradi. O‘quv koeffitsiyentlari yo‘llarni taqqoslashga yordam beradi, ammo odam yog‘ iste’mol qilgach haqiqiy ATP ishlab chiqarishni o‘lchamaydi. Shu sababli «palmitat aniq 106 ATP molekulasini beradi» ifodasida hisob shartlari bo‘lishi kerak.
6.3. Erkin energiya va samaradorlik
Model termodinamik samaradorligini η = N₍ATP₎ × ΔG₍ATP sintezi₎ / |ΔG₍substrat oksidlanishi₎| deb ifodalash mumkin. Ikki erkin energiya taqqoslanadigan holat va sharoitlarga tegishli bo‘lishi kerak. Standart o‘zgartirilgan energiya va hujayra ichidagi haqiqiy ATP sintezi energiyasi o‘zaro almashtirilmaydi. Hisob reagent konsentratsiyalari yoki faolliklari, harorat va tizimning belgilangan chegaralarini talab qiladi.
Bitta hisobda standart oksidlanish energiyasini hujayra ichidagi taxminiy ATP xarajati bilan aralashtirish universal o‘lchangan samaradorlikni bermaydi. Faqat arifmetik bo‘lish tirik to‘qima samaradorligini aniqlamaydi. Shuning uchun bahoni talqin qilishdan avval sharoit va hisob chegaralarini belgilash foydaliroq. Mutaxassis uchun muhim tamoyil shuki, energiyaning sezilarli qismi saqlanadi, boshqa qismi tarqaladi va bu ulushlar bog‘lanish holatiga qarab o‘zgaradi.
7. To‘liq bo‘lmagan oksidlanish, CoA va metabolik moslashuvchanlik
7.1. Kiruvchi oqim keyingi quvvatdan oshganda
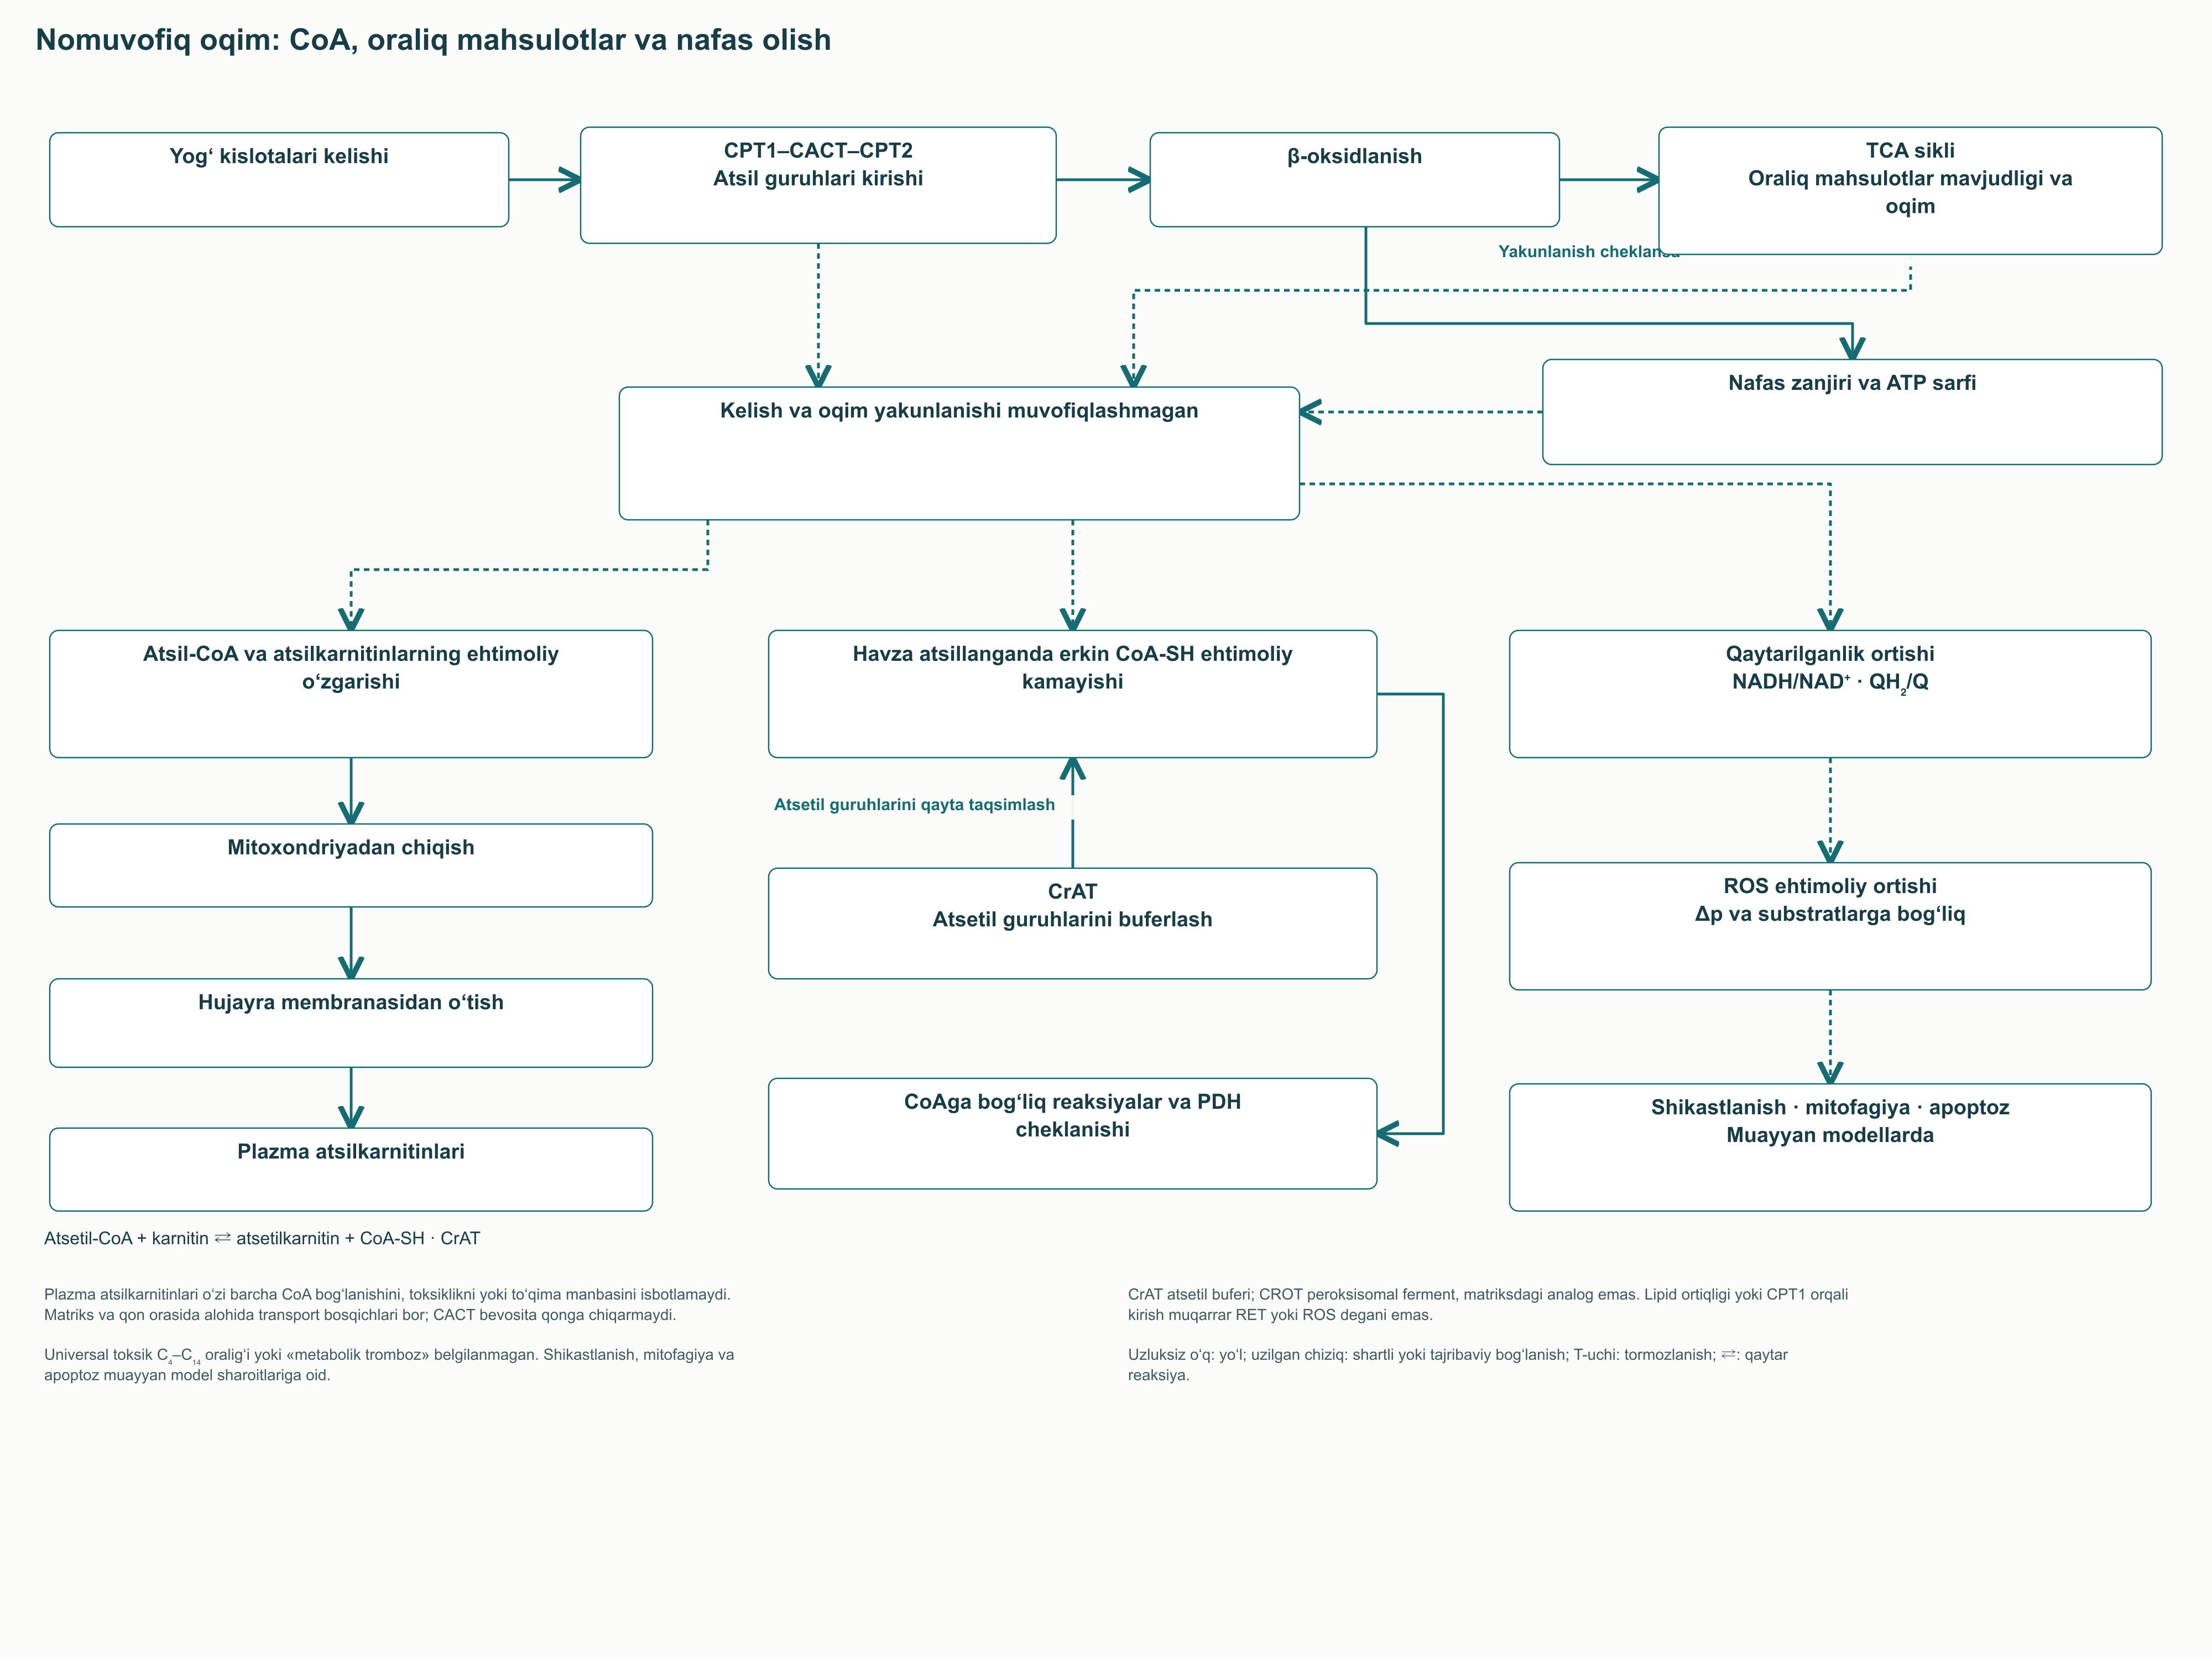
Uzun zanjirli atsil guruhlarining matriksga yetkazilishi ortishi ulardan foydalanishning faqat birinchi bosqichidir. β-oksidlanish, trikarboksil kislotalar sikli, nafas zanjiri va ATP sarfi muvofiq ishlashi kerak. Substrat oraliq mahsulotlar oksidlanishidan tezroq kelsa, alohida fermentlar faolligi saqlansa yoki ortsa ham, ularning konsentratsiyalari o‘zgaradi. Shu sababli «yog‘ oksidlanishi ko‘proq» degan ibora aniqlashtirilishi kerak: u boshlang‘ich reaksiyalar, CO₂ gacha to‘liq oksidlanish yoki elektron oqimi ortishini anglatishi mumkin.
2008-yilda Koves va hamkasblari mushak modellari va hayvonlarda metabolik ortiqcha yuklanishni o‘rgandi. Ular insulinga rezistentlikni β-oksidlanish oqimi ortishi, uglevodlarga o‘tish buzilishi va trikarboksil kislotalar sikli oraliq moddalarining o‘zgarishi bilan bog‘ladi. Ayrim eksperimental sharoitlarda yog‘ kislotalarining mitoxondriyaga kirishini cheklash metabolik javobni yaxshilagan. Bu CPT1 ning har qanday ortishi insulinga sezgirlikni yaxshilashi kerak degan fikrga jiddiy e’tirozdir.
Eksperimental bog‘lanish to‘liq bo‘lmagan β-oksidlanish diabetning barcha shakllarini tushuntiradi degani emas. Atsilkarnitin profillari to‘qimalar, oziqlanish holati, yuklama va kasalliklar bo‘yicha farqlanadi. Ba’zida yuqori daraja tez almashinuvni, ba’zida keyingi cheklov yoki tashish buzilishini ko‘rsatadi. Atsilkarnitin toksiklikning universal dalili emas, uning konsentratsiyasi metabolik oqim o‘lchovini almashtirmaydi.
NADH/NAD⁺ nisbati ortishi bir qator reaksiyalar uchun oksidlangan kofaktor mavjudligini kamaytiradi. QH₂/Q holati ham ETF va nafas zanjirining boshqa kirishlari orqali yangi elektronlarni qabul qilish qobiliyati bilan bog‘liq. ATP ehtiyoji yetarli bo‘lmasa yoki nafas cheklansa, CPT1 substrat yetkazayotgan bo‘lsa ham oqim sekinlashishi mumkin. Bu nisbatlar qayta aloqani tushuntiradi, ammo siklning har bir fermentiga bir xil allosterik ta’sirni belgilamaydi.
7.2. «CoA tutib qolinishi» va atsetilkarnitin roli
Erkin CoA-SH atsil hosilalari paydo bo‘lganda sarflanadi va ular keyin ishlatilganda tiklanadi. Jamlanmaning sezilarli qismi atsillangan holda qolsa, boshqa reaksiyalar uchun mavjud CoA yetishmasligi mumkin. «CoA tutib qolinishi» shu cheklovni tasvirlaydi, ammo uni aniqlash erkin va bog‘langan fraksiyalar haqidagi ma’lumotni talab qiladi. Plazmadagi bir nechta atsilkarnitin konsentratsiyasining ortishi o‘zi matriks CoA si tugaganini ko‘rsatmaydi.
Qisqa zanjirli karnitinatsetiltransferaza CrAT atsetil-CoA + karnitin ⇄ atsetilkarnitin + CoA-SH reaksiyasi orqali atsetil guruhlarini qayta taqsimlashga yordam beradi. Bu karnitin almashinuvining faqat CPT1 ga yuklab bo‘lmaydigan alohida vazifasi. Muoio va hamkasblari sichqon mushagida CrAT olib tashlanishi glyukozaga tolerantlik va substratlar almashishini buzishini ko‘rsatdi; ishda odam hujayralari va ishtirokchilari tadqiqotlari ham bo‘lgan. Natijalar atsetil guruhlarini buferlash va ularning piruvatdegidrogenaza kompleksiga tormozlovchi ta’sirini cheklash modelini qo‘llagan.
Atsetilkarnitin, uzun zanjirli atsilkarnitinlar va o‘rta zanjirli mahsulotlar kelib chiqishi hamda vazifalari bilan farqlanadi. CPT2 qaytuvchan uzun zanjirli ko‘chirishni katalizlay oladi, CrAT asosan qisqa guruhlarga ishlaydi, CROT esa peroksisomal almashinuv bilan bog‘liq. Bundan tashqari metabolitning mitoxondriyadan chiqishi, hujayra membranasini kesib o‘tishi va plazmada paydo bo‘lishi alohida tashish bosqichlaridir. Shu sababli «CACT atsilkarnitinlarni to‘g‘ridan-to‘g‘ri qonga chiqaradi» ko‘rsatkichi zarur oraliq jarayonlarni yashiradi.
Oksidlovchi stress, elektronlarning teskari ko‘chishi va mitoxondrial o‘tkazuvchanlik o‘tish teshigi ochilishi qaytarilgan Q jamlanmasi, membrana potensiali va hujayra shikastining muayyan kombinatsiyalarida mumkin. Ular atsilkarnitinlarning har bir ortishining muqarrar davomi emas. Apoptoz, mitofagiya va ajralishning ham o‘z mexanizmlari va sharoitlari bor. Ortiqcha yuklanish rasmida bu hodisalar muqarrar chiziqli zanjir emas, mumkin bo‘lgan oqibatlar sifatida beriladi.
7.3. RER, nafas koeffitsiyenti va yoqilg‘ilarni almashtirish
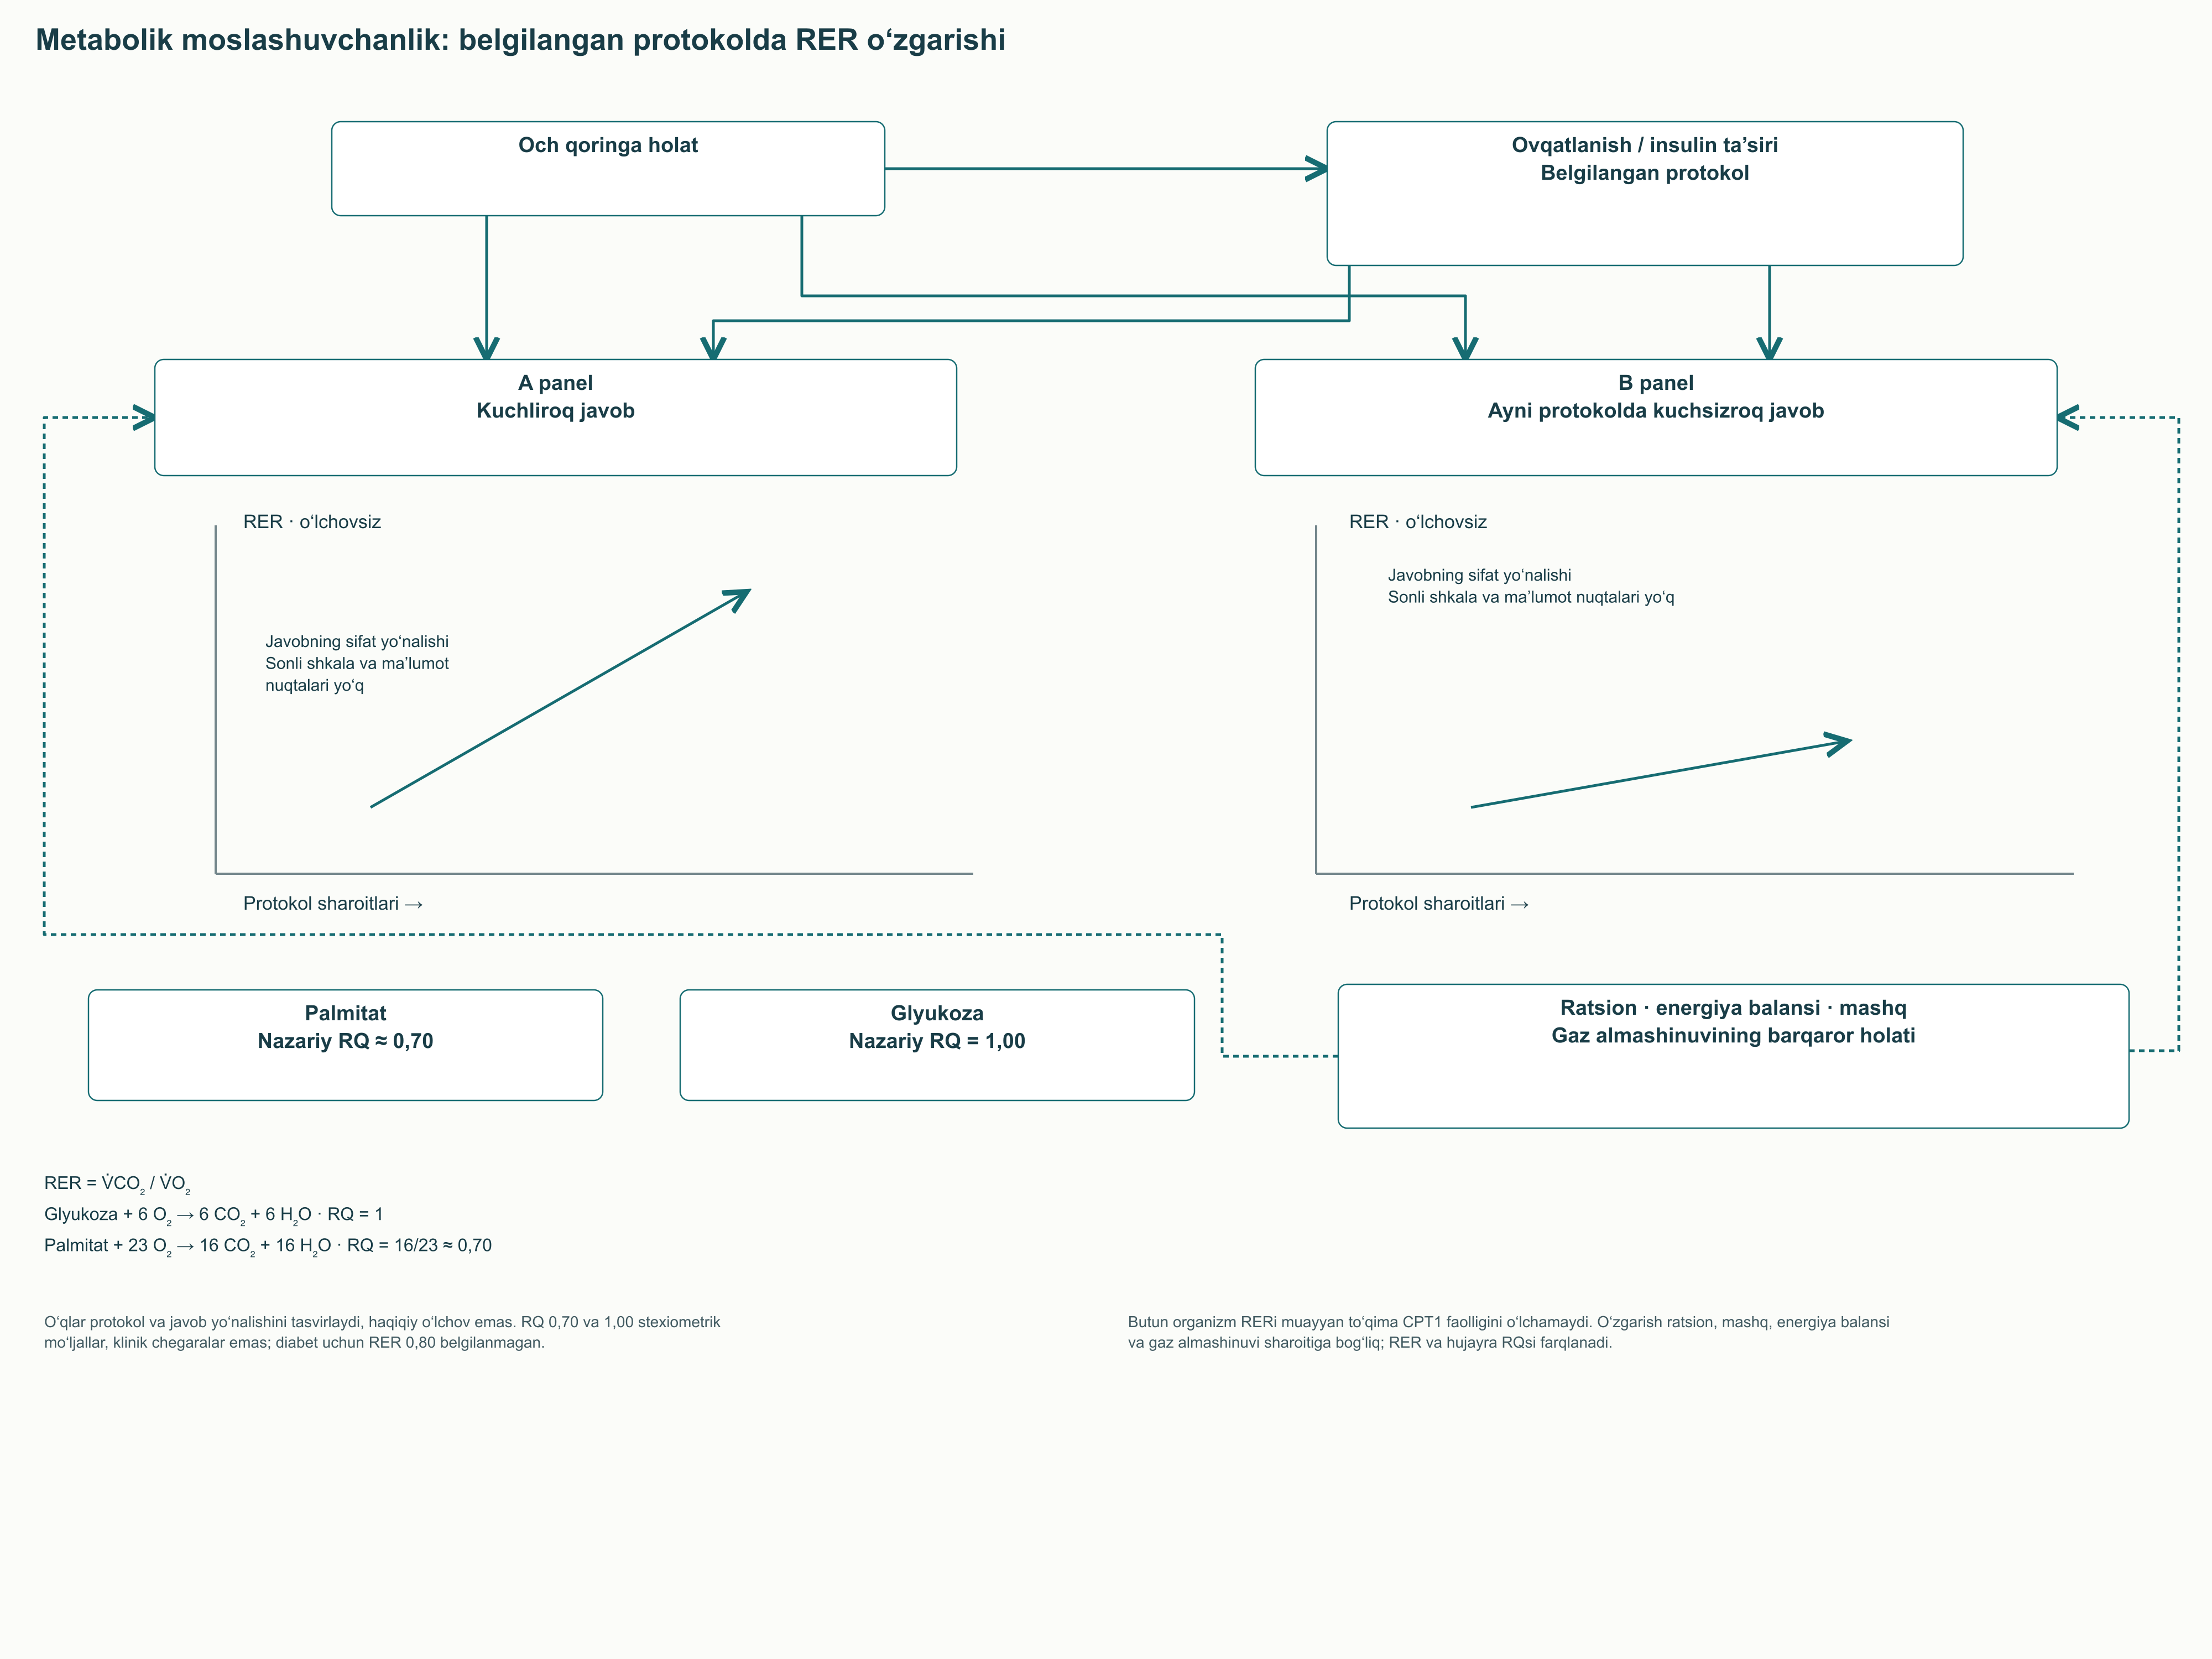
Metabolik moslashuvchanlik ochlikdan ovqatlanishga o‘tishda, insulin ta’sirida va jismoniy yuklamada substratlar ishlatilishini o‘zgartirish qobiliyatidir. Tadqiqot usullaridan biri O₂ sarfi va CO₂ hosil bo‘lishini o‘lchaydigan bilvosita kalorimetriyadir. Nafas oqimlari nisbati RER = V̇CO₂/V̇O₂. Kimyoviy reaksiya darajasida hosil bo‘lgan CO₂ ning sarflangan O₂ ga nisbati nafas koeffitsiyenti RQ dir; barqaror sharoitda ular yaqin bo‘lishi mumkin, ammo mutlaq bir xil emas.
Glyukoza uchun C₆H₁₂O₆ + 6 O₂ → 6 CO₂ + 6 H₂O, shuning uchun RQ = 6/6 = 1. Palmitat uchun C₁₆H₃₂O₂ + 23 O₂ → 16 CO₂ + 16 H₂O, demak RQ = 16/23 ≈ 0,70. Aralash substratlar ishlatilganda qiymat odatda shu o‘quv chekka qiymatlari orasida bo‘ladi. Oqsil oksidlanishi, keton tanachalari, lipogenez va CO₂ zaxiralari o‘zgarishi talqinni murakkablashtiradi.
Ovqatdan keyin yoki insulin ta’sirida uglevod oksidlanishi ulushining ortishi RER ko‘tarilishi bilan kuzatilishi mumkin. Metabolik almashtirish buzilganda o‘zgarish kichikroq bo‘lishi mumkin, ammo diabetning universal «0,80–0,83 da qotib qolgan RER»i yo‘q. Boshlang‘ich ratsion, energiya balansi, tayyorgarlik va o‘lchash sharoitlari natijaga sezilarli ta’sir qiladi. Shu sababli rasm to‘qilgan klinik chegaralar yoki haqiqiy o‘lchangan egri chiziqlarga taqlidsiz javob yo‘nalishlarini taqqoslaydi.
Jadal yuklamada kislotalar buferlanishi va CO₂ chiqarilishi kuchaygani uchun RER birdan oshishi mumkin. Buni tana «100% dan ortiq uglevod» oksidlayapti deb so‘zma-so‘z talqin qilib bo‘lmaydi. Xuddi shunday, ochlikdagi bitta o‘lchov CPT1 yetishmovchiligi tashxisini qo‘ymaydi va karnitin ehtiyojini belgilamaydi. Mutaxassis bir son orqali almashinuvni baholashdan ko‘ra bir protokoldagi standartlashtirilgan javoblarni taqqoslashdan ko‘proq foyda oladi.
7.4. Randle sikli va PDH ning qaytuvchan boshqarilishi
Yog‘ kislotalari oksidlanishi atsetil-CoA/CoA-SH va NADH/NAD⁺ nisbatlarini o‘zgartirib, piruvat ishlatilishiga ta’sir qiladi. Piruvatdegidrogenaza kompleksi PDH piruvatni atsetil-CoA ga aylantirib, uglevod almashinuvini trikarboksil kislotalar sikliga bog‘laydi. PDK lar kompleksni fosforlab faolligini pasaytiradi, piruvatdegidrogenaza fosfatazalari esa fosfat guruhlarini olib tashlaydi. Fosforlanish va defosforlanish oziqlanish hamda yuklama holatlari o‘rtasida PDH faolligini qaytuvchan o‘zgartirishga imkon beradi.
PDK4 ifodalanishi ochlik va gormonal signallarga javob beradigan izoformalardan biridir. FoxO1, KLF15 va boshqa boshqaruvchilar dasturni qayta tashkil qilishga hissa qo‘shishi mumkin, ammo hissasi to‘qima va holatga qarab farqlanadi. Akt orqali insulin signali FoxO1 faolligini o‘zgartirib, glyukoza mavjudligini gen boshqaruvi bilan bog‘laydi. Turli PDK lar PDH fosforlanish nuqtalarini turlicha ishlatadi, shuning uchun birlamchi dalilsiz PDK4 ning uchala nuqtaga bir xil ta’sirini taxmin qilib bo‘lmaydi.
Randle sikli substrat raqobati modeli sifatida foydali, lekin insulinga rezistentlikning barcha patofiziologiyasini almashtirmaydi. Piruvat oksidlanishi cheklanishi, glyukozaning hujayraga kirishi kamayishi va insulin signali buzilishi bog‘liq, ammo farqlanadigan hodisalardir. PDH faolligi pasayganda barcha glyukoza «laktatga tashlanmaydi»: u glikogen va boshqa yo‘llarga kirishi mumkin. Bu farq karnitin bufer mexanizmlari va taxminiy davolash ta’sirlarini talqin qilishda muhim.
8. Lipotoksiklik: qaysi lipidlar va qaysi signal yo‘llari
8.1. Diatsilglitserollar, seramidlar va joylashuv
Yog‘ kislotasi energiya substrati, zaxira lipidi, membrana qismi yoki signal molekulasiga aylanishi mumkin. Lipid tomchisidagi triatsilglitserol signal oqsili yonidagi diatsilglitserolga teng emas. DAG uchun stereokimyo, atsil tarkibi va oqsil kinazalarining C1 domenlariga ochiqlik muhim. Shu sababli umumiy «mushak yog‘i» miqdori lipotoksik yukni avtomatik tasvirlamaydi.
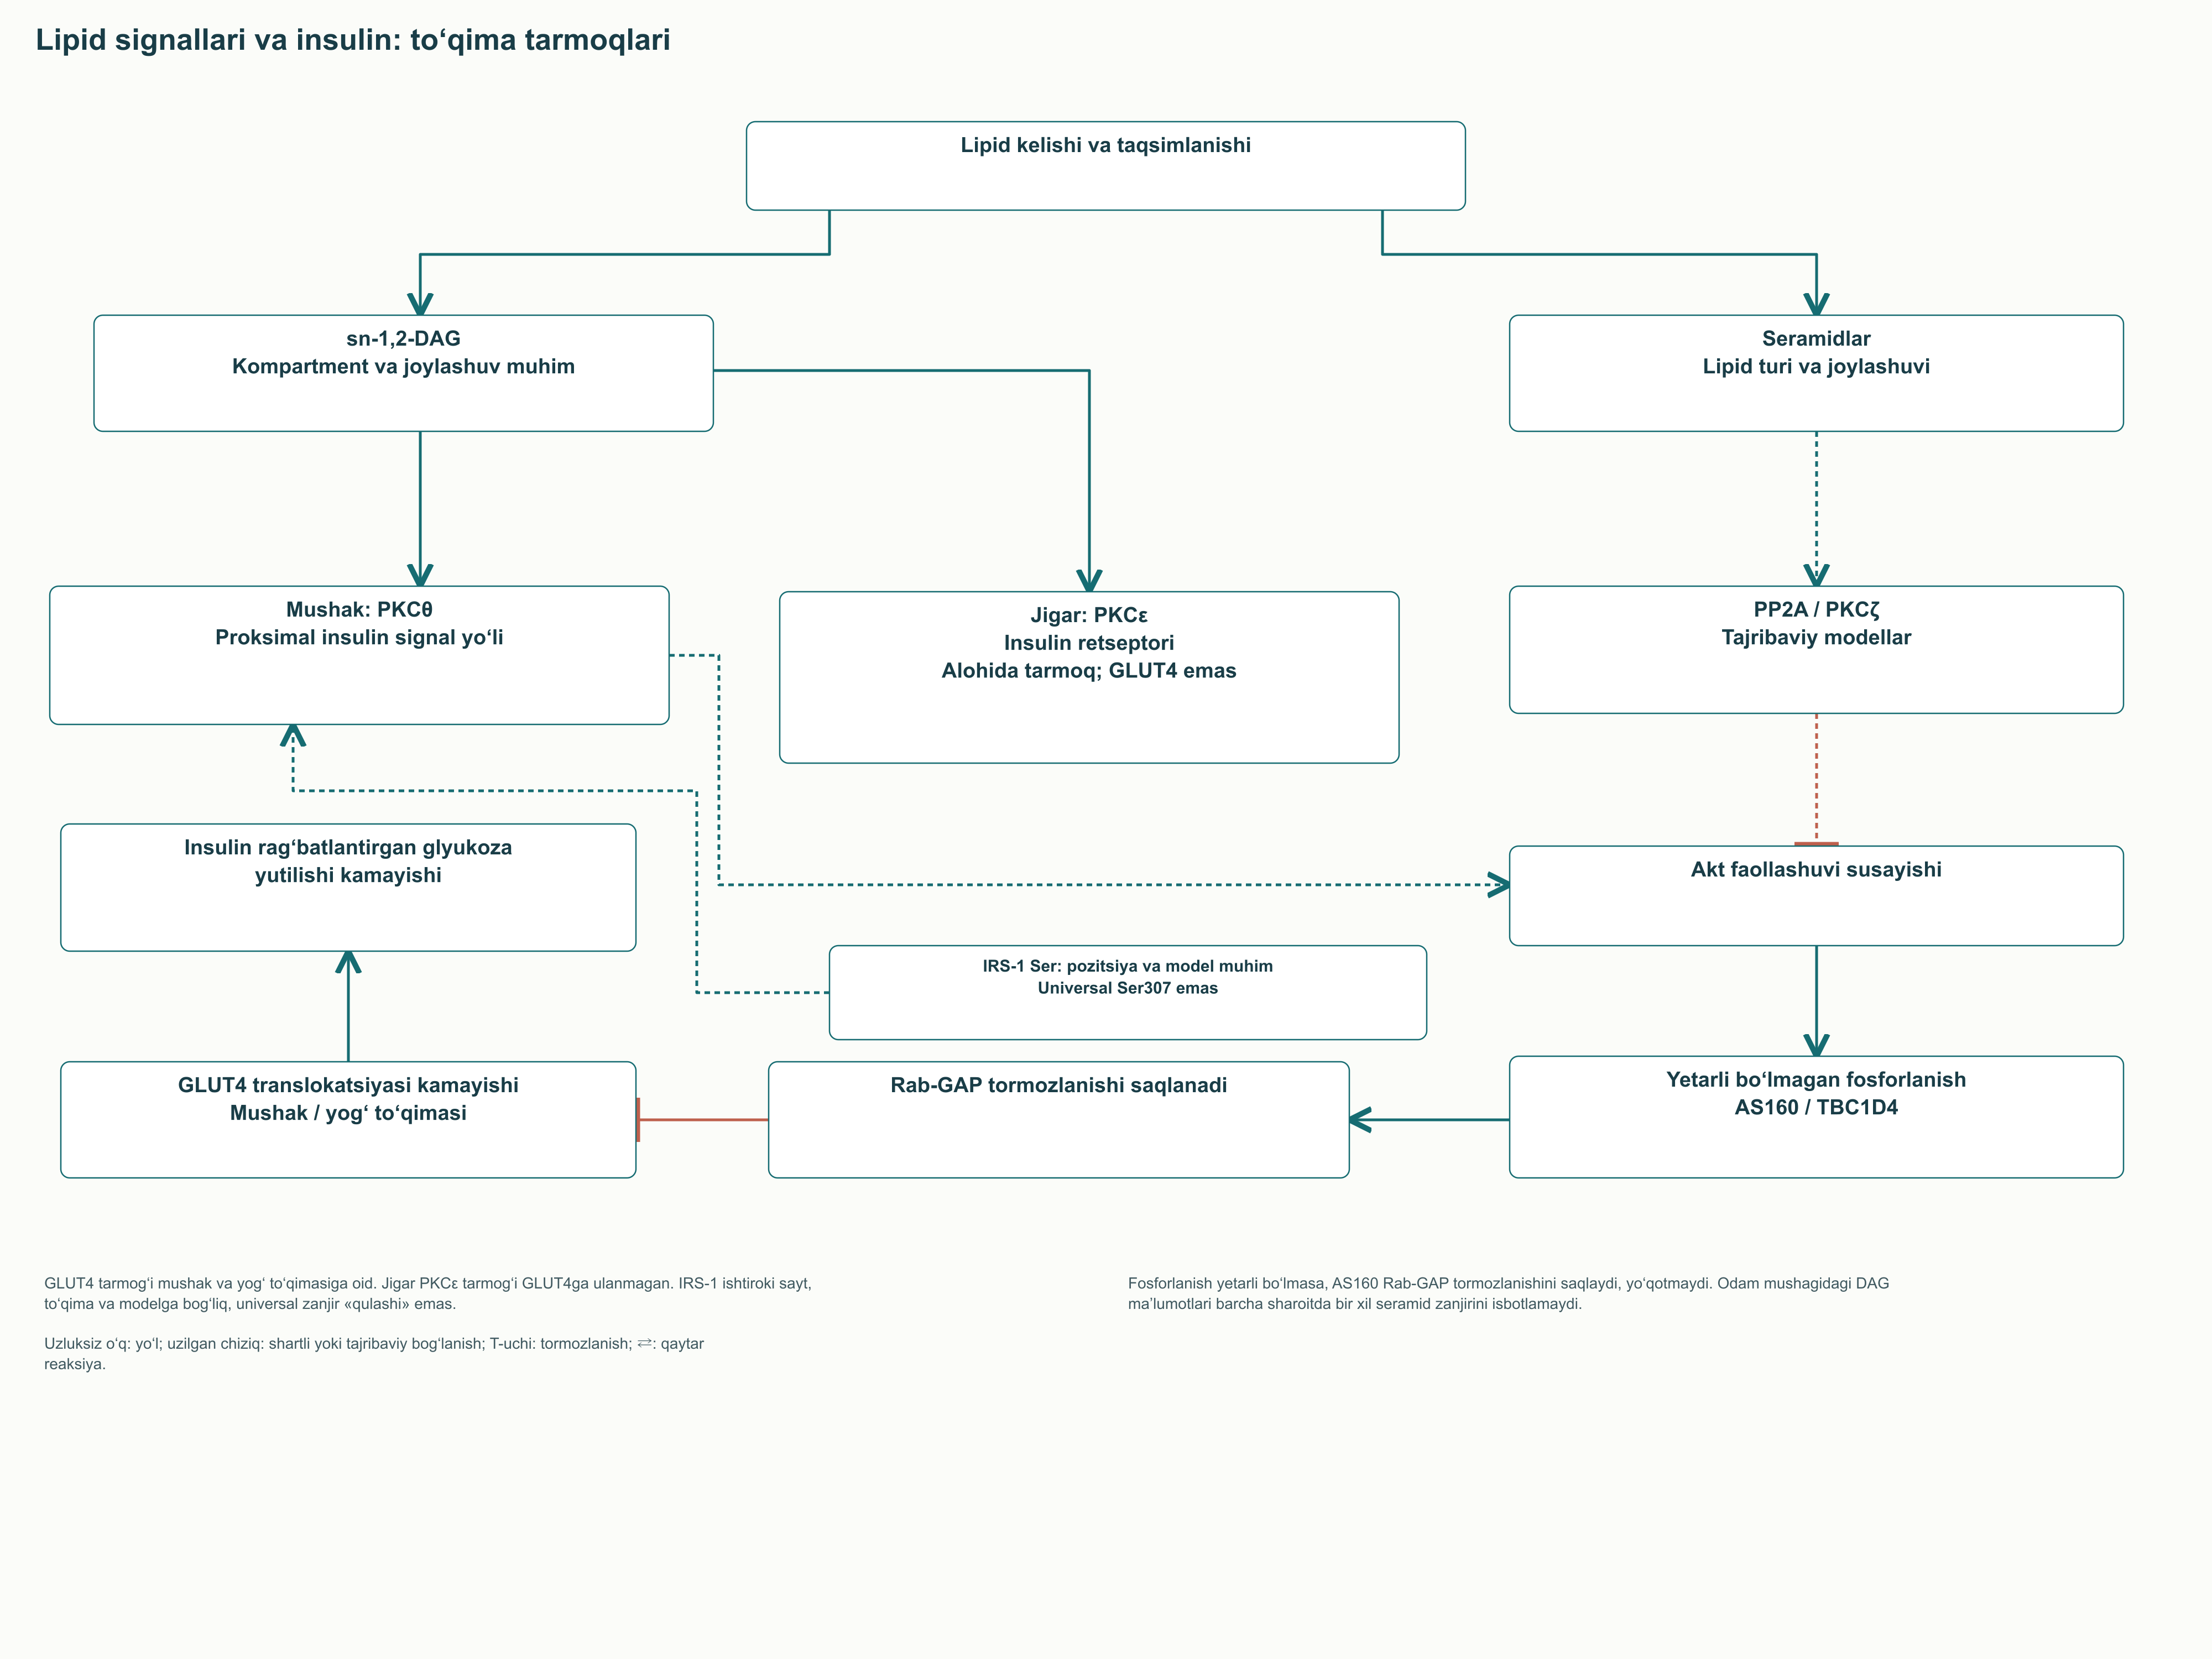
Szendroedi va hamkasblari tadqiqotida lipid infuziyasi paytida odam mushagining ketma-ket biopsiyalari DAG, PKCθ faollashuvi va insulin signali o‘zgarishini kuzatgan. IRS1 Ser1101 fosforlanishi va keyingi javobning zaiflashuvi bilan bog‘lanishlar kuzatilgan. Ayni tizimda insulinga rezistentlikni tushuntiradigan seramid va atsilkarnitin o‘zgarishlari aniqlanmagan. Bu natijalar barcha lipid metabolitlarini nega shartsiz bitta sababiy zanjirga birlashtirib bo‘lmasligini ko‘rsatadi.
Jigarda eksperimental ravishda boshqa yo‘l — DAG–PKCε va insulin retseptori faolligi o‘zgarishi o‘rganilgan. Petersen va hamkasblari odam retseptoridagi Thr1160 ni PKCε substrati sifatida aniqlab, mos almashtirishni sichqonlarda o‘rgangan. Demak, jigar va mushak mexanizmlarining aniq aralashuv nuqtalari turlicha. Jigar ham mushakdagi GLUT4 yo‘lini insulinga bog‘liq glyukoza qabulining asosiy mexanizmi sifatida ishlatmaydi.
Mushakda Akt AS160 deb ataladigan TBC1D4 fosforlanishi bilan bog‘liq. Bu uning ayrim Rab oqsillariga tormozlovchi GAP ta’sirini kamaytirib, GLUT4 tutuvchi vezikulalar membranaga ko‘chishini yengillashtiradi. Insulin signali zaiflashganda ketma-ketlik buzilishi mumkin. «AS160 faol emasligicha qoladi» iborasi ma’noni teskarilagan: fosforlanmagan oqsilning saqlangan tormozlovchi vazifasi normal javobga xalaqit berishi mumkin.
8.2. Serin fosforlanishi doimo zarar degani emas
IRS1 ning ko‘p fosforlanish nuqtalari bor, ularning ta’siri pozitsiya, vaqt va hujayra kontekstiga bog‘liq. Copps va hamkasblari tajribalarida odam Ser312 siga mos sichqon Irs1 Ser307 sini almashtirish insulinga rezistentlikni kuchaytirgan. Bu shu serindagi har qanday fosfat insulin signalini buzishi kerak degan qoidaga bevosita zid. Shu sababli tur va muayyan tajribani ko‘rsatmay Ser307 ni universal patologik nishon sifatida chizib bo‘lmaydi.
Seramidlar PP2A va atipik PKC lar orqali Akt ga ta’sir qilishi hamda membrana stressi va hujayra o‘limida qatnashishi mumkin. Biroq alohida seramid turlari vazifalari farqli, eksperimental rol esa odam biopsiyasidagi umumiy miqdor o‘zgarishiga har doim mos emas. Palmitat haqiqatan sfingolipid sinteziga substrat beradi, ammo aniq natija lipid tarkibi va hujayraning ishlov berish quvvatiga bog‘liq. Sababiy xulosa aralashuv, tegishli fraksiya o‘lchovi va tizimning belgilangan darajasidagi natijani talab qiladi.
PERK va IRE1 orqali endoplazmatik retikulum stressi, yallig‘lanish signallari va mitoxondrial shikast bu yo‘llarni to‘ldirishi mumkin. Ularning mavjudligi glyukoza qabulining bir xil 70–80% kamayishi yoki muqarrar yurak yetishmovchiligini oldindan aytmaydi. Dastlabki matndagi bunday qat’iy qiymatlar muayyan tajriba bilan bog‘langan yetarli asosga ega emas edi. Klinik talqin lipotoksiklikni palmitatdan diabetga bitta kaskad emas, kontekstga bog‘liq mexanizmlar tarmog‘i sifatida ko‘rishdan ko‘proq foyda oladi.
9. Irsiy nuqsonlar va CPT1A ning Arktika varianti
9.1. CPT1A yetishmovchiligi: ketogenez yetarli bo‘lmagan gipoglikemiya
CPT1A keskin yetishmaganda jigar ochlikda uzun zanjirli yog‘ kislotalaridan kamroq samarali foydalanadi. Glikogen tugagach ham energiya ehtiyoji davom etadi, ammo keton tanachalari ishlab chiqarilishi va glyukoza almashinuvini qo‘llash yetarli bo‘lmaydi. Xos klinik signal — gipoketotik gipoglikemiya: glyukoza past, ketonlar esa nomutanosib oz ko‘tariladi. Lanjlik, tutqanoq, jigar zararlanishi va giperammoniyemiya, ayniqsa infeksiya yoki ovqat kamayganida bo‘lishi mumkin.
Uzun zanjirli atsilkarnitinlarga nisbatan erkin karnitin ortishi CPT1 reaksiyasining o‘zi cheklanganligi bilan bog‘liq. Skriningda C₀/(C₁₆ + C₁₈) nisbati ishlatilishi mumkin, ammo aniq fraksiyalar va chegaralar laboratoriya protokoliga bog‘liq. «50–100 dan yuqori»ni barcha namunalar uchun universal diagnostik mezon deb berib bo‘lmaydi. Tasdiq bitta nisbatga emas, biokimyoviy va molekulyar-genetik ma’lumotlar yig‘indisiga asoslanadi.
Mushak energiya almashinuvi saqlanishi boshqa izoforma mavjudligi bilan tushuntiriladi, ammo jigar dekompensatsiyasini xavfsiz qilmaydi. Amaliy yuritish tamoyili uzoq ochlikni oldini olish va kasallik payti uchun individual rejani saqlashdir. Mutaxassislar o‘rta zanjirli yog‘larni ko‘rib chiqishi mumkin, chunki ayrim tarkibiy qismlari CPT1 ga kamroq bog‘liq. Biroq ratsion, ruxsat etilgan ochlik oraliqlari va boshqa choralar muayyan bemor uchun belgilanadi; monografiya bu rejaning o‘rnini bosmaydi.
9.2. CPT2 va CACT: to‘siq CPT1 dan keyinda
CPT2 yetishmovchiligi og‘ir neonatal yoki go‘daklik shakllari, yoxud asosan mushak kasalligi sifatida namoyon bo‘lishi mumkin. Miopatik shakl uchun qaytalanuvchi mushak og‘rig‘i, zaiflik, rabdomioliz va mioglobinuriya xos, ba’zida xurujlar orasida sog‘liq normal. Qo‘zg‘atuvchilar uzoq yuklama, infeksiya, ochlik yoki sovuqdir. Boshlanish yoshi va og‘irlik genotip hamda sharoitga bog‘liq, shuning uchun «kattalar shakli» erta boshlanishni inkor qilmaydi.
Og‘ir erta shakllar jigar, yurak va boshqa a’zolarni qamraydi. Eng og‘ir neonatal holatlarda buyrak va miya zararlanishi mumkin, ammo barcha spektrni tug‘ma nuqsonlarning yagona majburiy to‘plami bilan tasvirlab bo‘lmaydi. Ma’lum p.Ser113Leu varianti miopatik fenotip bilan bog‘liq, lekin har bir holatni tushuntirmaydi. To‘liq genetik va klinik kontekstsiz bitta keng tarqalgan almashtirish orqali klinik shaklni ishonchli aniqlab bo‘lmaydi.
CACT yetishmovchiligi SLC25A20 bilan bog‘liq bo‘lib, allaqachon hosil bo‘lgan atsilkarnitinning ichki membranadan tashilishini buzadi. Og‘ir holatlar ham gipoglikemiya, giperammoniyemiya, kardiomiopatiya va aritmiyalar bilan kechishi mumkin. Uzun zanjirli atsilkarnitin profillari CPT2 yetishmovchiligi bilan qoplanishi mumkin, shu sababli biokimyoviy natija to‘siq joyini doim aniqlamaydi. Bu holatlarni farqlashda genetik tasdiq va maxsus talqin ayniqsa muhim.
Buzilish
Cheklov joyi
Xos diagnostik mantiq
Amaliy ahamiyat
CPT1A yetishmovchiligi
Uzun zanjirli atsilkarnitin hosil bo‘lishi
Nisbatan ko‘p erkin karnitin va oz uzun zanjirli hosila; CPT1A tasdig‘i
Ochlikka chidamsizlik va jigar dekompensatsiyasi
CACT yetishmovchiligi
Atsilkarnitin ichki membranadan tashilishi
O‘zgargan uzun zanjirli atsilkarnitin profili; SLC25A20 tasdig‘i
Og‘ir erta tizimli kasallik mumkin
CPT2 yetishmovchiligi
Matriks tomonda atsil-CoA qayta hosil bo‘lishi
Atsilkarnitin profili CACT bilan qoplanishi mumkin; CPT2 tasdig‘i
Erta tizimli shakllar yoki qaytalanuvchi rabdomioliz
Birlamchi karnitin yetishmovchiligi
Hujayra qabul qilishi va buyrakda karnitin saqlanishi
Past erkin karnitin; SLC22A5 tasdig‘i
O‘rinbosar davolash talab qiladigan boshqa nuqson
Jadval nuqson topologiyasini ko‘rsatadi, bitta songa asoslangan diagnostik algoritm emas. Ayrim o‘zgarishlar xurujdan tashqarida sustroq bo‘lishi, quruq qon dog‘i namunasi esa miopatik CPT2 yetishmovchiligini doim inkor qilmasligi mumkin. Klinik qo‘zg‘atuvchi, biokimyoviy profil va genetik natijalar yig‘indisi faqat karnitin o‘zgarishidan muhimroq. Qaytalanuvchi rabdomiolizni oddiy «qo‘shimcha yetishmasligi» bilan tushuntirish ayniqsa xavfli.
9.3. p.Pro479Leu: keng tarqalganlik zararsizlik emas
CPT1A c.1436C>T, p.Pro479Leu varianti ayrim Arktika populyatsiyalarida tez-tez uchraydi. Rajakumar va hamkasblarining Grenlandiyadagi 1111 inuit tadqiqotida L479 alleli chastotasi taxminan 0,73 bo‘lgan, genotip esa ayrim lipid ko‘rsatkichlari bilan bog‘langan. Bu muayyan tanlanma va assotsiatsiyani tasvirlaydi, butun Arktika yoki yurak-qon tomir hodisalaridan isbotlangan himoyani emas. Boshqa guruh va hududlardagi chastotalarni avtomatik bitta universal qiymat bilan almashtirmaslik kerak.
Biokimyoviy jihatdan qoldiq faollik pasayishi va malonil-CoA ga sezgirlik susayishi muhokama qilinadi. Bular qarama-qarshi yo‘nalishda ishlashi mumkin: tormozlanish kamligi katalitik quvvat pasayishini avtomatik qoplamaydi. Shu sababli an’anaviy ratsionga taxminiy moslashuv tanlanish haqidagi faraz bo‘lib qoladi. U har bir tashuvchida uzluksiz yuqori ketogenez yoki klinik afzallikni belgilamaydi.
Gillingham va hamkasblari shu variantga gomozigot besh bolaning tibbiy nazoratli ochlikka javobini o‘rgandi. Uzun zanjirli atsilkarnitin va keton hosil bo‘lishi susaygan, ikki test esa gipoglikemik belgilar sabab to‘xtatilgan. Natijalar variant keng tarqalganiga qaramay ochlikka chidamlilikning fiziologik muhim cheklovini ko‘rsatadi. Ular tashuvchilarda shartsiz ortgan ketogenez fikrini qo‘llamaydi.
Bolalar o‘limi bilan populyatsion bog‘lanishlar infeksiya, oziqlanish, tibbiy yordamga kirish va boshqa omillarni hisobga olishni talab qiladi. Ularni faqat ko‘p uglevodli ratsionga o‘tish bilan tushuntirib bo‘lmaydi. Klinik vazifa etnik belgilangan ratsion tayinlash emas, xavfli epizodlarni oldini olish va genotipni to‘g‘ri talqin qilishdir. Tanlanish tarixi va individual tibbiy xavf turli savollarga javob beradi.
10. Organizmdagi karnitin: tashish, shakllar va qo‘shimchalar
10.1. OCTN2 ni CACT bilan chalkashtirmaslik kerak
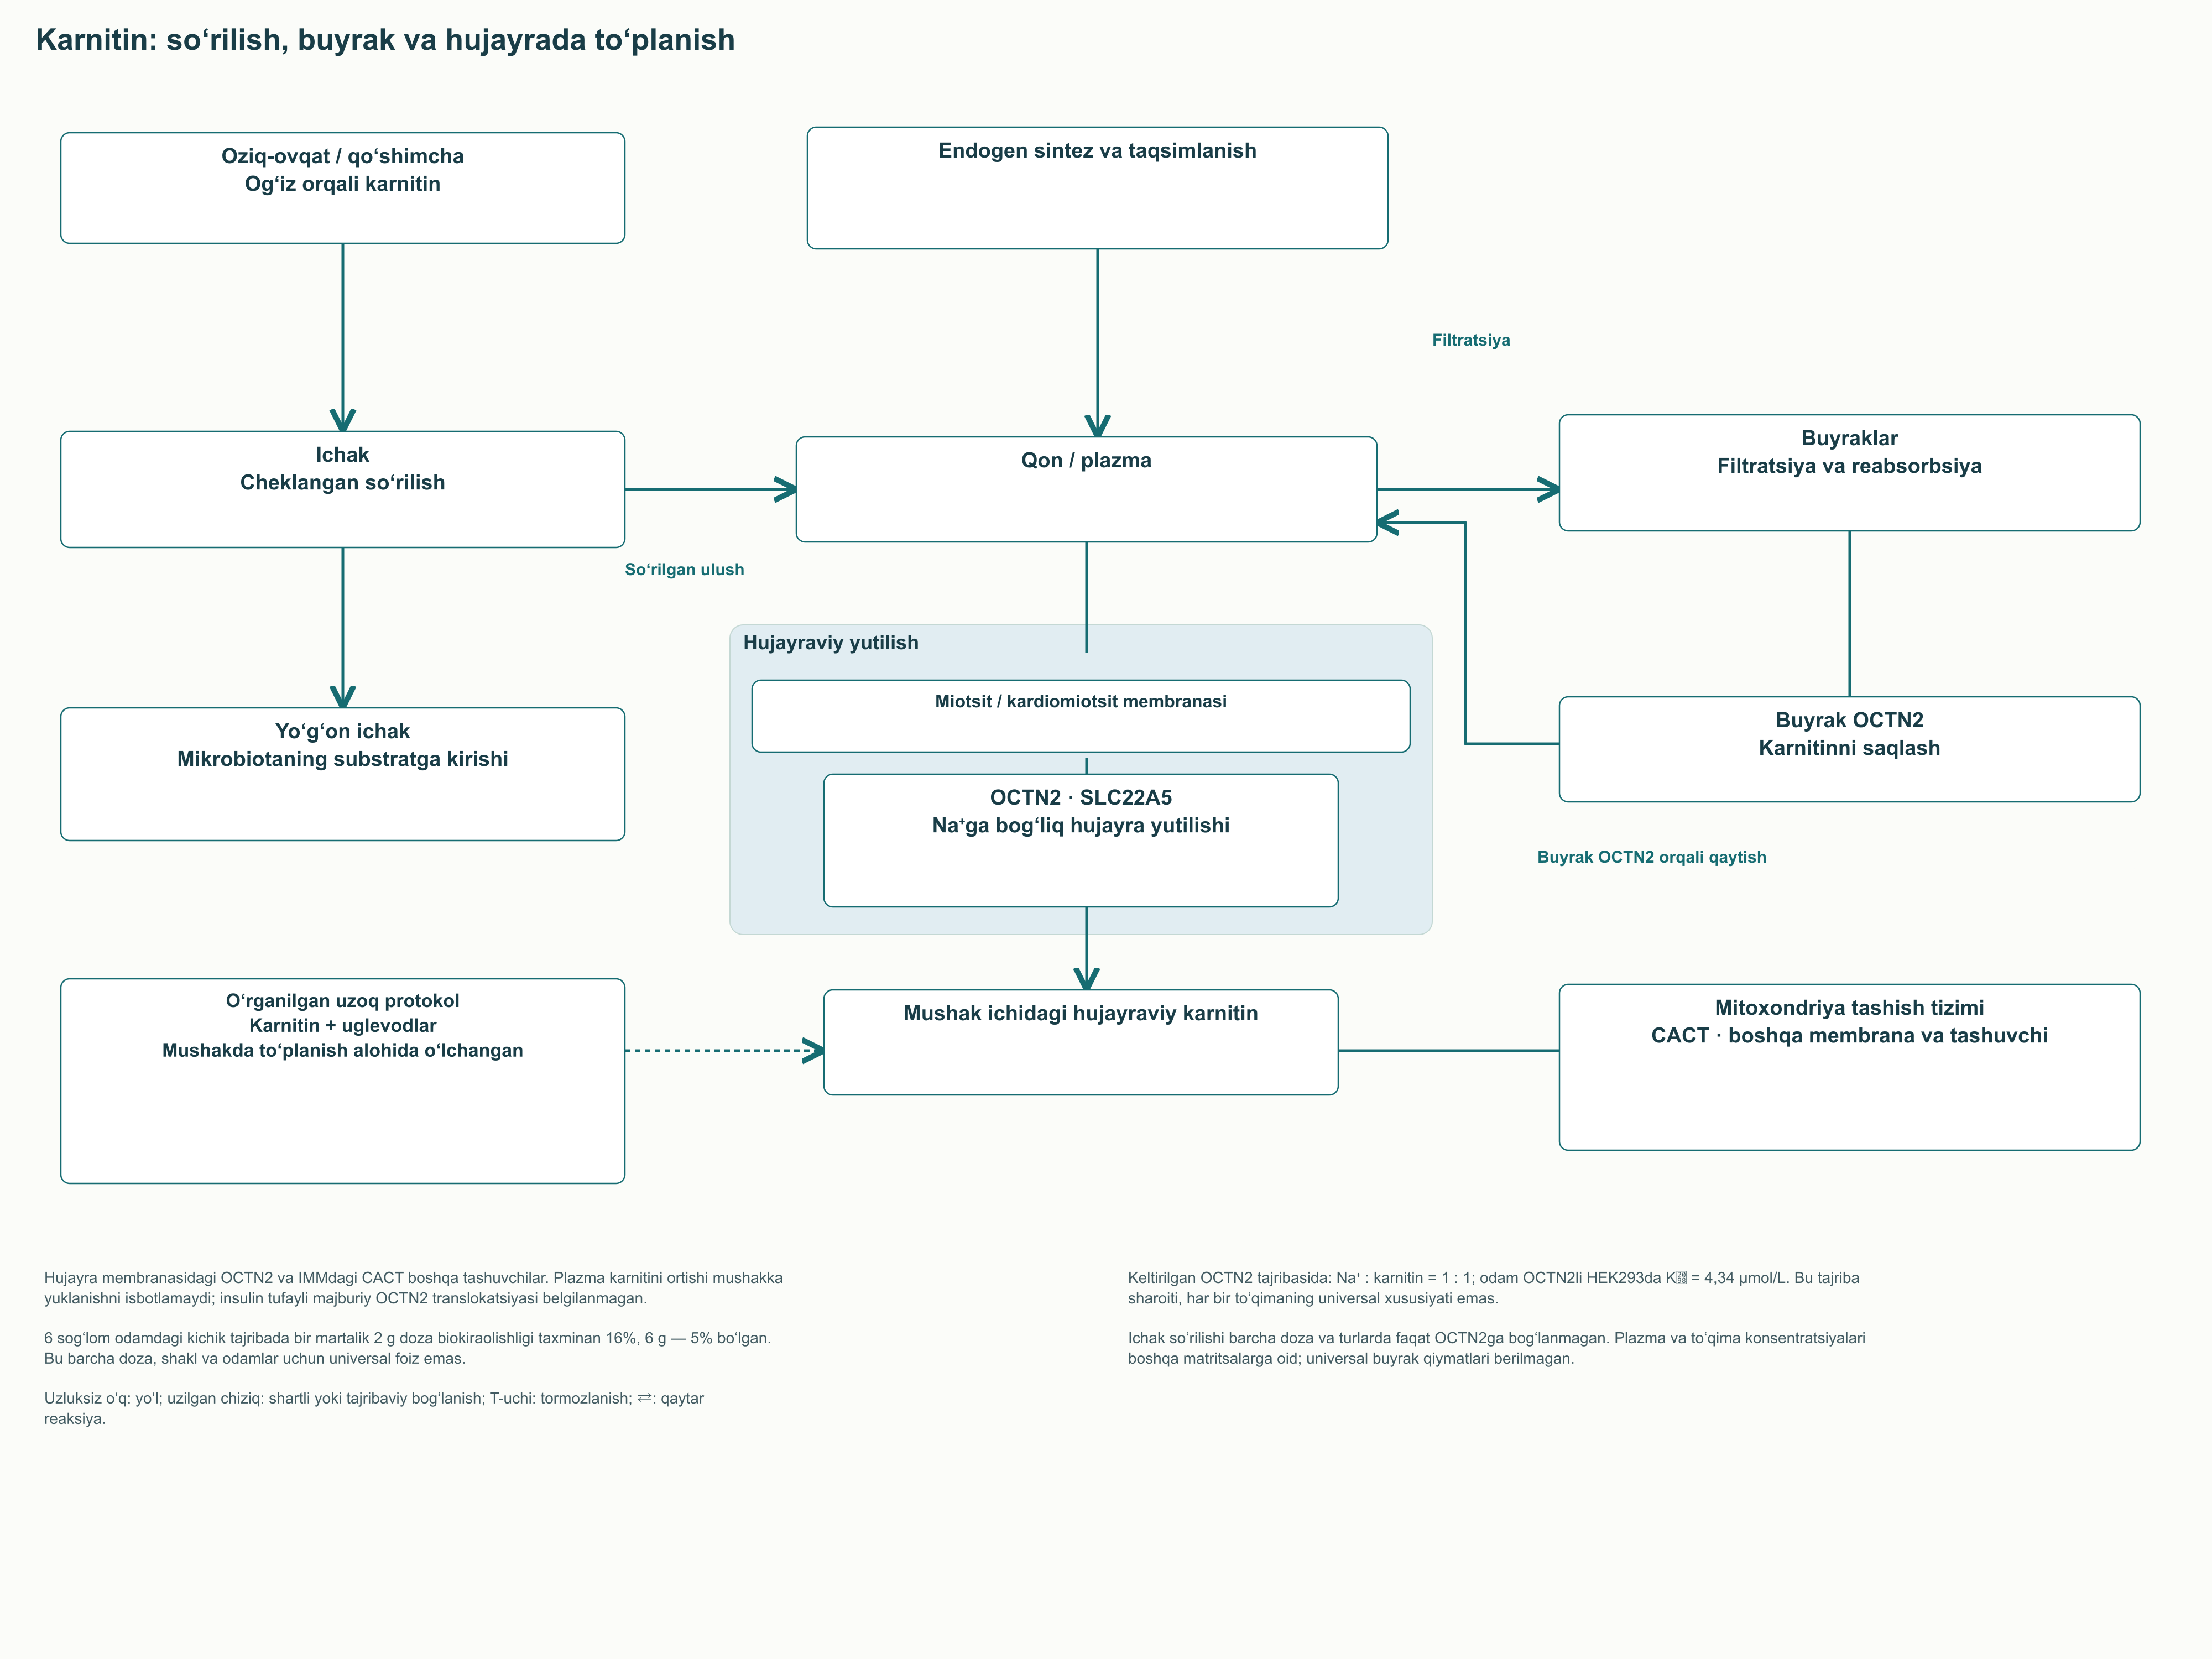
SLC22A5 kodlaydigan OCTN2 hujayra membranasida joylashib, yuqori yaqinlikli natriyga bog‘liq karnitin qabulini ta’minlaydi. CACT ichki mitoxondrial membranada joylashib, tizim ichida karnitinni atsilkarnitin bilan almashtiradi. Bular ikkita turli to‘siq va tashish mexanizmi. Qondagi karnitin ortishi miotsit karnitini yoki mitoxondrial oqim ortganini avtomatik ko‘rsatmaydi.
Tamai va hamkasblari odam OCTN2 sini HEK293 hujayralarida ifodalaganda taxminan 4,34 mkmol/l Kₘ o‘lchagan. Bu klinik maqsad karnitin darajasini emas, muayyan hujayra tajribasini tavsiflaydi. Tashish tadqiqotlari natriy va karnitin simportini 1:1 deb tasvirlaydi; keltirilgan funksional ma’lumot bitta karnitinga ikkita Na⁺ ni qo‘llamaydi. Tashuvchi ishi natriy gradiyenti bilan bog‘liq, ammo insulin tomonidan substratning mitoxondrial membranadan bevosita o‘tkazilishi emas.
To‘qima karnitinining ko‘pi mushakda jamlangan, plazma jamlanmasi esa ancha kichik. Buyrakdagi qayta so‘rilish karnitinni saqlashga yordam beradi, balans oziqdan kirish va endogen sintezni ham qamraydi. Yuqori og‘iz dozalarida so‘rilish va saqlanish cheklovga aylanadi, shu sababli ta’sir ichilgan miqdorga mutanosib emas. To‘g‘ri taqqoslash birliklar va o‘lchov matritsalarini moslashtirishni talab qiladi: qo‘shimcha shartsiz to‘qimaning kilogrammidagi millimolni plazma litrining mikromoliga shunchaki bo‘lib bo‘lmaydi.
Harper va hamkasblarining olti sog‘lom qatnashuvchili kichik farmakokinetik tadqiqotida bir martalik 2 g dozaning biologik o‘zlashtirilishi taxminan 16%, 6 g dozaniki esa 5% bo‘lgan. Bu raqamlar katta dozalarni o‘zlashtirish cheklanganini ko‘rsatadi, ammo har tuz, ovqat yoki bemor uchun universal qiymatlar emas. Oddiy ovqat karnitini va farmakologik bolyus doza kinetikasi ham farqli. Shu sababli mushakni kam yuklashni bir martalik dozani oshirish bilangina ishonchli yengib bo‘lmaydi.
10.2. Birlamchi tizimli karnitin yetishmovchiligi
OCTN2 funksiyasining keskin yo‘qolishi karnitinning to‘qimaga qabul qilinishi va buyrakda saqlanishini buzadi. Birlamchi karnitin yetishmovchiligi gipoketotik gipoglikemiya, kardiomiopatiya va mushak zaifligi bilan namoyon bo‘lishi mumkin, ammo spektr yengil va simptomsiz variantlarni ham qamraydi. Bu irsiy kasallik ratsionga bog‘liq oddiy plazma karnitini o‘zgarishidan farq qiladi. Juda past daraja, jumladan birlamchi buzilishni boshqa almashinuv kasalliklaridagi ikkilamchi o‘zgarishlardan farqlash uchun tekshiruv talab qiladi.
Tasdiqlangan birlamchi yetishmovchilikdagi levokarnitin o‘rinbosar davosining maqsadi sog‘lom odamning sport yoki vazn nazorati uchun qabulidan boshqacha. U buzilgan gomeostazda substratni to‘ldirib, doza tanlash va biokimyoviy kuzatuvni nazarda tutadi. Universal «o‘ta yuqori doza»ni kiritish va ta’sirini faqat passiv diffuziyaga yuklash noto‘g‘ri bo‘lardi. Genetik tashxis, og‘irlik, ko‘tara olish va kuzatuv individual rejimni belgilaydi.
Ikkilamchi yetishmovchilik ayrim orttirilgan holatlar, dorilar va boshqa irsiy buzilishlarda bo‘lishi mumkin. Past tahlil natijasi charchoq yoki yuklamaga chidamlilik buzilishini karnitin tushuntirishini belgilamaydi. Har β-oksidlanish nuqsonida ham avtomatik karnitin tayinlamaslik kerak: to‘siq joylari va uzun zanjirli hosilalar to‘planishi xavfi farqlanadi. Asosiy amaliy qadam «kuchliroq» shakl tanlash emas, metabolik sababni aniqlashdir.
10.3. L-karnitin, tartrat, fumarat va ALCAR
L-karnitin fiziologik ishlatiladigan stereoizomer; tartrat va fumarat uning tuz shakllari, atsetil-L-karnitin esa atsil hosilasidir. Bu karnitin miqdorini hisoblashda muhim: tuz massasi erkin modda massasi emas. Tegishli stexiometriyali suvsiz L-karnitin L-tartratda karnitin ulushi taxminan 68%, biroq aniq mahsulot yorlig‘i qaysi miqdor ko‘rsatilganini aytishi kerak. Muayyan tuzning o‘zi yaxshiroq sport yoki yurak-qon tomir natijalarini belgilamaydi.
Fumarat trikarboksil kislotalar sikli oraliq moddasi, lekin bu har karnitin-fumarat tuzi uchun yurak sinergiyasini isbotlamaydi. Xuddi shunday, tezroq erish mushakni yaxshiroq yuklashga teng emas. Shakl afzalligini da’vo qilish teng faol modda dozasi va klinik ahamiyatli natijalardagi bevosita taqqoslashni talab qiladi. Tartratni sport samarasi uchun afzal deyish uchun aynan shunday qiyosiy ma’lumot kerak.
Atsetil-L-karnitin, ALCAR, atsetil guruhlari almashinuvida qatnashadi va asab tizimida o‘rganiladi. Uning tashilishi va aylanishini «to‘siqdan yaxshiroq o‘tadi — atsetilxolinga aylanadi — sinapslarni himoya qiladi»ga keltirib bo‘lmaydi. To‘qimada mavjudlik, metabolik ta’sir va simptom yaxshilanishi alohida savollar. Xususan, atsetil guruhining almashinuvdagi ishtiroki atsetilxolin sintezini klinik foydali darajada albatta oshirmaydi.
Thal va hamkasblarining ko‘p markazli bir yillik tadqiqotida ALCAR umumiy Altsgeymer kasalligi guruhida asosiy natijalar yomonlashishini sekinlashtirmagan. Keyingi erta boshlanuvchi kasallik sinovi ham asosiy natijalarda kutilgan umumiy foydani ko‘rsatmagan. Shu sababli «neyroprotektor» so‘zi kognitiv buzilishlarni davolashning tayyor dalili bo‘lmasligi kerak. Alohida kasalliklar va tadqiqot natijalarini universal ertalabki ALCAR kursiga birlashtirmay, alohida muhokama qilish lozim.
11. Klinik tadqiqotlar: aslida qaysi natija o‘lchangan
11.1. Glikemiya, tana vazni va tana tarkibi
Karnitinning mexanistik roli uni metabolik tadqiqotlar uchun mantiqli nomzod qiladi, ammo klinik ta’sir tashish vazifasidan alohida baholanadi. Tadqiqotlar ishtirokchilar tashxisi, boshlang‘ich ratsion, davomiylik, modda shakli va birgalikdagi davolash bilan farqlanadi. Birlashtirilgan natija shu ishlar to‘plamiga tegishli, sog‘lom sportchi va diabetli bemorda bir xil javobni anglatmaydi. Laboratoriya ko‘rsatkichi o‘zgarishi bilan kasallik asoratlari oldini olishni farqlash ayniqsa muhim.
Zamani va hamkasblarining 2023-yilda chop etilgan metatahlili 2900 qatnashuvchili 41 randomizatsiyalangan tadqiqotni birlashtirgan. Nazoratga nisbatan o‘rtacha farq ochlik glyukozasida −3,22 mg/dl, HbA1c da −0,27 foiz punkt va HOMA-IR da −0,73 bo‘lgan. Turlichalik yuqori: I² mos ravishda 88,6%, 90,1% va 98,2%. Shu sababli statistik ahamiyatli o‘rtacha ta’sirni qon glyukozasining barqaror individual pasayishi yoki insulinga rezistentlikning isbotlangan davosi deb berib bo‘lmaydi.
Bu yerda foiz punkt va nisbiy foiz turli narsalar. HbA1c ning 8,00% dan 7,73% ga o‘zgarishi −0,27 foiz punkt, nisbiy o‘zgarish esa −0,27 / 8,00 × 100% ≈ −3,4%. HOMA-IR ochlik insulin va glyukoza konsentratsiyalaridan hisoblanadi; u CPT1 orqali oqimni bevosita o‘lchamaydi. Hatto bu ko‘rsatkichlar bir vaqtda yaxshilansa ham, mumkin bo‘lgan metabolik tarmoqlardan qaysi biri natijani bergani aniqlanmaydi.
Tana vazni uchun Talenezhad va hamkasblari 2292 qatnashuvchili 37 randomizatsiyalangan tadqiqotni birlashtirgan. O‘rtacha vazn farqi −1,21 kg, 95% ishonch oralig‘i −1,73 dan −0,68 kg gacha, tana massasi indeksi farqi esa −0,24 kg/m² bo‘lgan. Yog‘ massasi kilogrammlarda baholangan, biroq tana yog‘i foizi va bel aylanasiga umumiy ahamiyatli ta’sir topilmagan. Yuqori sifatli ishlar tahlilida tana vazniga ta’sir dalili saqlangan, bu tana tarkibining o‘zgarishi haqidagi kuchliroq va’dalarni cheklaydi.
Savol
Tanlangan tahlil nimani ko‘rsatdi
Qolgan cheklov
Glikemiya o‘zgaradimi?
Turlicha tadqiqotlar to‘plamida bir necha ko‘rsatkichning kichik o‘rtacha pasayishi
Yuqori turlichalik, har xil boshlang‘ich holatlar va klinik asoratlar haqida avtomatik xulosa yo‘qligi
Tana vazni o‘zgaradimi?
Vazn va tana massasi indeksining mo‘tadil o‘rtacha farqi
Barcha ishtirokchilarda bir xil javob va barqaror ratsion o‘zgarishlaridan ustunlik aniqlanmagan
Tana yog‘i foizi o‘zgaradimi?
37 ish metatahlilida umumiy ahamiyatli ta’sir aniqlanmagan
Kilogrammdagi yog‘ massasi va tana yog‘i foizi o‘zaro almashtirilmaydi
Metaregressiyadan optimal dozani aniqlash mumkinmi?
Mavjud tadqiqotlardagi statistik bog‘lanishni tasvirlash mumkin
Bu dozalarni bevosita taqqoslash yoki individual tayinlashni almashtirmaydi
Bu kuzatilgan ta’sir miqyosini saqlagan holda karnitinni ayrim klinik holatlarda o‘rganilayotgan yordamchi vosita sifatida muhokama qilishga imkon beradi. Bu qo‘shimchani ortiqcha tana vaznida majburiy qilmaydi va tayinlangan davoni almashtirishga asos bermaydi. Muayyan natija qiziqtirsa, u oldindan belgilanadi: vazn, yuklamaga chidamlilik, HbA1c yoki hodisalar chastotasi. Aniq maqsadsiz modda tanlash hatto ijobiy tahlil natijasini ham talqin qilishni qiyinlashtiradi.
11.2. Yurak-qon tomir natijalari va CEDIM-2
Ishemiya kislorod yetkazilishi va uglevod hamda yog‘ oksidlanishi balansini o‘zgartiradi. Shu sababli karnitin va boshqa metabolik aralashuvlar miokard infarktidan keyin o‘rganilgan, ammo fiziologik mantiq o‘limning isbotlangan kamayishiga teng emas. Davolash boshlanish vaqti, yuborish yo‘li, fon reperfuziya davosi va asosiy yakuniy nuqta muhim. Turli davr ishlarini bugungi universal ikkilamchi profilaktika va’dasiga birlashtirmaslik kerak.
DiNicolantonio va hamkasblarining 2013-yil metatahlili 3629 qatnashuvchili 13 nazoratli tadqiqotni qamragan. Barcha sababli o‘lim uchun imkoniyatlar nisbati 0,73, 95% ishonch oralig‘i 0,54–0,99, xavf nisbati esa 0,78, oralig‘i 0,60–1,00 bo‘lgan. Mualliflar qorincha aritmiyalari va stenokardiya kamligi signallarini ham topgan, ammo yurak yetishmovchiligi yoki qayta infarktning ishonchli umumiy kamayishini topmagan. Imkoniyatlar nisbatini ko‘rsatmasdan «o‘lim xavfi 27% tushadi» deyish turli statistik o‘lchovlarni chalkashtirib, kuchliroq ishonch taassurotini yaratadi.
Randomizatsiyalangan CEDIM-2 sinoviga old devorning ST ko‘tarilishli miokard infarkti bo‘lgan 2330 bemor kirgan. Ish rejalashtirilgandan kam ishtirokchi bilan tugagan, olti oydagi o‘lim yoki yurak yetishmovchiligi asosiy qo‘shma nuqtasi 9,2% va 10,5% da yuz bergan, p = 0,27. Erta o‘limning ikkilamchi bahosi ijobiy signal bergan, ammo bu salbiy asosiy natijani aniqlangan umumiy samaradorlikka aylantirmaydi. Bu tadqiqot xulosasi eng qulay taqqoslash emas, oldindan belgilangan natija bilan aniqlanishining foydali misoli.
Infarktdan keyingi metatahlil natijasi
Ta’sir o‘lchovi
Talqin
Barcha sababli o‘lim
OR 0,73; 95% IO 0,54–0,99; RR 0,78; 95% IO 0,60–1,00
Ta’sir o‘lchoviga bog‘liq chegaraviy natija
Qorincha aritmiyalari
RR 0,35; 95% IO 0,21–0,58
Tarixiy nazoratli ishlar to‘plamidagi signal
Stenokardiya
RR 0,60; 95% IO 0,50–0,72
O‘lim yoki qayta infarkt kamayishiga teng emas
Yurak yetishmovchiligi
RR 0,85; 95% IO 0,67–1,09
Statistik ishonchli umumiy ta’sir aniqlanmagan
Qayta miokard infarkti
RR 0,78; 95% IO 0,41–1,48
Keng oraliqli noaniq baho
11.3. Jigarning steatotik kasalligi
Jigarning steatotik kasalligida karnitinga qiziqish yog‘ kislotalari yetkazilishi, sintezi, saqlanishi va oksidlanishi balansi bilan bog‘liq. Malaguarnera va hamkasblarining randomizatsiyalangan ishida noalkogol steatogepatitli bemorlarda karnitin 24 hafta dietik aralashuv bilan birga o‘rganilgan. Mualliflar biokimyoviy va gistologik ko‘rsatkichlarni baholagan, shu sababli ishni klinik tajriba sifatida muhokama qilish mumkin. Biroq natija karnitinni hozir metabolik disfunksiyaga bog‘liq steatotik jigar kasalligi deb ataladigan barcha shakllarning standart davosi sifatida belgilamaydi.
Yog‘ kislotalari mitoxondriyaga kirishini kuchaytirish yallig‘lanish yoki fibroz bartaraf bo‘lishini kafolatlamaydi. Nomuvofiq oqim oraliq mahsulotlar to‘planishi va oksidlovchi stress ortishiga, yetarli bo‘lmagan kirish esa lipid to‘planishiga olib kelishi mumkin. Demak, klinik savol CPT1 faolligidan kengroq: jigar holati, tana vazni, diabet, ratsion va dori davosini qamraydi. «CPT1 aktivatori steatozni yo‘q qiladi» va’dasi bu cheklovlarni tashlab, klinik natijani bitta ferment ko‘rsatkichi bilan almashtiradi.
12. Karnitin, mashq va metabolik signallarni birlashtirish
12.1. Mushakni yuklash vaqt va muayyan protokol talab qiladi
Wall va hamkasblari sog‘lom erkaklarning kichik guruhida karnitinni uglevodlar bilan uzoq qabul qilishni o‘rgandi. 24 hafta aralashuv guruhi kuniga ikki marta 2 g L-karnitin L-tartrat va 80 g uglevodli ichimlik olgan; nazorat guruhiga uglevod berilgan. Bu dizayn birikmani aniq sharoitlarda, jumladan sezilarli uglevod qabulida sinagan. U mashq oldidan darhol bitta kapsula ichish yoki ochlikda qo‘shimcha olishdan ancha farq qiladi.
Tadqiqotda mushak karnitini taxminan 21% ortgani va turli yuklama intensivliklarida yoqilg‘i ishlatish o‘zgargani topilgan. Past intensivlikda glikogen sarfi kamaygan, yuqori intensivlikda esa piruvatdegidrogenaza kompleksi faolligi va laktat to‘planishi o‘zgargan; bajarilgan ish bo‘yicha ijobiy signal ham bo‘lgan. Biroq kichik tanlanma va uzoq qo‘shma protokol natijani boshqa populyatsiya va rejimlarga ko‘chirishni cheklaydi. Ish mushak jamlanmasini o‘zgartirish mumkinligini ko‘rsatadi, ammo karnitinning universal o‘tkir ergogen ta’sirini isbotlamaydi.
Bir sharoitdagi glikogenni tejash barcha sharoitda uglevod oksidlanishini iloji boricha bostirish kerak degani emas. Yuqori intensivlikda glyukoza va glikogenni tez ishlatish qobiliyati sport samaradorligining bir qismiga aylanadi. Bundan tashqari atsetilkarnitin ortishi faqat yog‘ kislotalari importining tezlashishini emas, atsetil guruhlarini buferlashni aks ettirishi mumkin. Shu sababli yuklamadagi karnitin rolini bitta «yog‘ yoquvchi» atamasi bilan emas, metabolik moslashuvchanlik va erkin CoA mavjudligi orqali tushuntirish yaxshiroq.
L-karnitin L-tartrat ishlari kuch mashqidan keyingi tiklanishni ham baholagan. Volek va hamkasblari tadqiqotida o‘zgarishlar eksperimental stress protokolidan keyingi shikast va tiklanish markerlariga tegishli bo‘lgan. Bu o‘lchovlar aniqlangan gipertrofiya, maksimal kuch ortishi yoki jarohat profilaktikasiga teng emas. Tiklanishga oid alohida ijobiy kuzatuv teng karnitin miqdorida tartratning barcha boshqa shakllardan ustunligini belgilamaydi.
Stephens va hamkasblarining keyingi ishida 12 erkak 12 hafta karnitinli yoki karnitinsiz uglevod ichimligi olgan. Karnitin guruhida mushak jamlanmasi va past intensivlik mashqidagi energiya sarfi ortgan, nazoratda kuzatilgan yog‘ massasi ortishi esa yuz bermagan. Laboratoriyada o‘lchangan maksimal CPT1 faolligi sezilarli o‘zgarmagan. Natija metabolik oqim bilan ferment maksimal faolligini farqlaydi, uglevod protokolidagi vazn ortishining oldini olishni esa odatiy ratsiondagi isbotlangan ozish deb qayta nomlamaslik kerak.
12.2. FatMax universal puls sohasi emas, o‘lchanadigan xususiyat
FatMax muayyan testda yog‘ oksidlanishining maksimal mutlaq tezligi erishiladigan intensivlikni bildiradi. U tayyorgarlik, yuklama protokoli, oldingi ovqat va gaz almashinuvi o‘lchovi sharoitiga bog‘liq. Energiyaning yog‘dan keladigan ulushi va bir daqiqada oksidlangan yog‘ grammlari turli miqdorlar. Juda yengil yuklamada yog‘ ulushi katta bo‘lishi, ammo mutlaq yoqilg‘i sarfi past qolishi mumkin.
Achten va Jeukendrup ning 55 tayyorgarlikli erkak tadqiqotida o‘rtacha maksimal tezlik VO₂max ning 62,5 ± 9,8% ida 0,52 ± 0,15 g/min bo‘lgan. Shu nisbatan bir xil guruhdagi tarqoqlikning o‘zi «hamma uchun 60–65%» va «0,6–0,8 g/min» nega universal me’yor emasligini ko‘rsatadi. Test takrorlanuvchanligi alohida baholanib, u ham cheklangan. O‘rtacha qiymat tadqiqotning odatiy profilini tushuntiradi, lekin individual o‘lchovsiz odam pulsini belgilamaydi.
Hatto FatMax ni aniq aniqlash haftalar yoki oylar davomida yog‘ massasining eng katta yo‘qolishini kafolatlamaydi. Vazn o‘zgarishi barqaror energiya balansi, ishtaha orqali qoplash va kunning qolgan qismidagi faollikka bog‘liq. Mashq turli qobiliyatlarni rivojlantiradi, intensivlik tanlashda ular tiklanish va ko‘tara olish bilan birga hisobga olinadi. Jadal mashqdagi katta uglevod hissasi foydali moslashuv bilan kechishi mumkin, shu sababli doimo eng ko‘p yog‘ oksidlashga urinish mashq maqsadini toraytiradi.
12.3. «Metabolik stek» g‘oyasidan nima qoladi
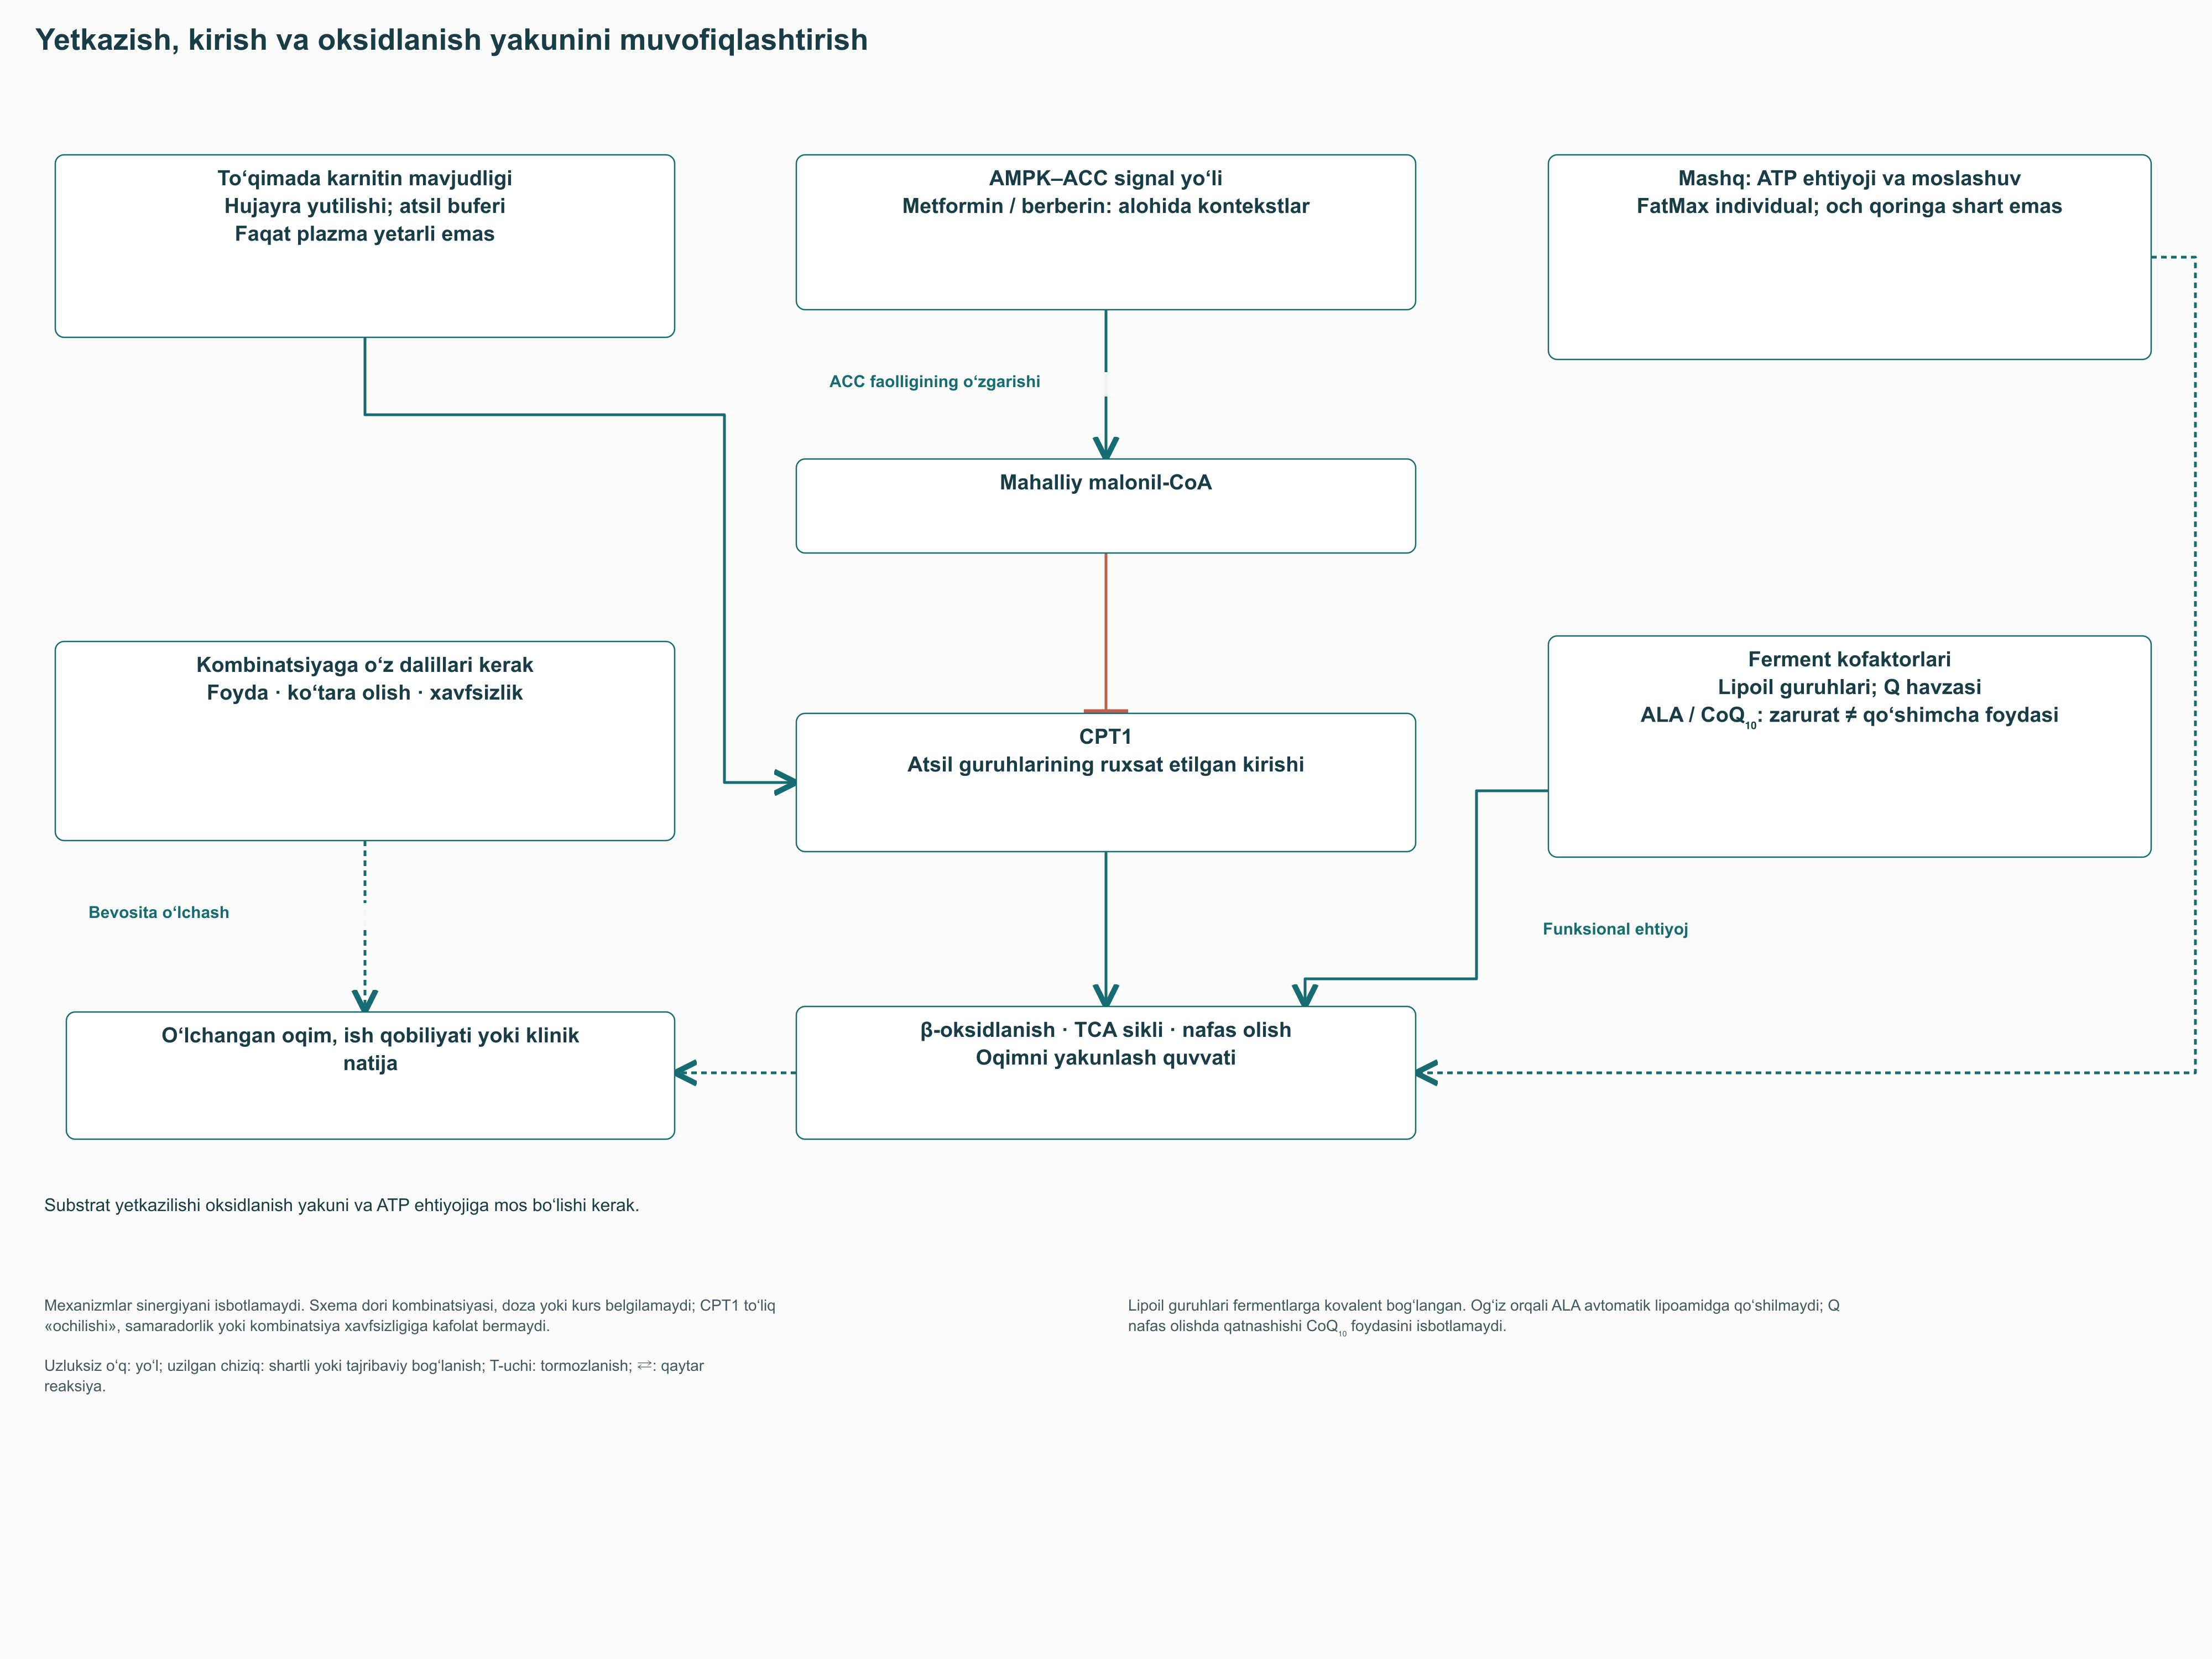
Metabolizmga kombinatsiya orqali ta’sir qilish g‘oyasi odatda AMPK faollashuvi, malonil-CoA pasayishi, qo‘shimcha karnitin va aerob mashqni birlashtiradi. Bular to‘rt turli daraja: ferment faolligini o‘zgartirish signali, ingibirlanishni yengillatish, tashiladigan substrat mavjudligi va energiya ehtiyoji. Ularni muvofiqlashtirish biologik mantiqli, lekin mantiqli mexanizmlar yig‘indisi hali sinovdan o‘tgan kombinatsiya emas. Keyingi oksidlanish yoki ATP ehtiyoji cheklansa, qo‘shimcha substrat yetkazish natijani yaxshilamasligi mumkin.
Metformin AMPK–ACC kontekstida o‘rganilgan, ammo uning klinik harakatini CPT1 ni bevosita yoqishga keltirib bo‘lmaydi. Eksperimental tizimlarda energiya almashinuviga ta’sir qiladigan berberin va boshqa birikmalarni ham u bilan o‘zicha qabul uchun tayyor rejimga birlashtirib bo‘lmaydi. Qo‘shma aralashuv doza, o‘zaro ta’sir, ko‘tara olish va tanlangan natija bo‘yicha alohida dalil talab qiladi. Bitta komponent mexanizmidan butun birikmaning sinergiyasi ham, xavfsizligi ham hisoblab chiqarilmaydi.
Keyingi reaksiyalar kofaktorlari ham kombinatsiya g‘oyasiga kiritilgan: ayrim degidrogenaza komplekslariga lipoil guruhlari kerak, ubixinon esa nafas tizimi elektronlarini qabul qiladi. Biroq fermentdagi lipoamid kovalent biriktirilgan kofaktor, og‘izdan olingan α-lipoy kislotasi esa har bir shunday joyni avtomatik to‘ldirmaydi. Qo‘shimcha Q10 kofermentini ham nafas zanjiri cheklovini olib tashlashning universal usuli deb bo‘lmaydi. Bu molekulalarning biokimyoviy zaruratini yetishmovchilik sababi aniqlanmagan holda ularni qo‘shishning isbotlangan foydasidan farqlash kerak.
Ochlikda karnitin olish uglevod bilan uzoq mushak yuklash protokolini takrorlamaydi. Aksincha, tadqiqot sharoitini o‘zgartirish mushakka karnitin yetkazilishining taxminiy mexanizmini o‘zgartiradi. Yog‘ kislotalari oksidlanishi buzilgan odamda ochlikdagi mashq xavfi sog‘lom fiziologik tajriba qatnashuvchisidan butunlay boshqacha bo‘lishi mumkin. Shu sababli birlashtirish rasmi mazmunli g‘oyani dori retseptiga aylantirmasdan boshqaruv darajalari va cheklovlarni ko‘rsatadi.
Aralashuv darajasi
Biologik ma’no
Foydali ta’sir sharti
Oldindan nimani xulosa qilib bo‘lmaydi
Energetik signal va AMPK
ACC va boshqa nishonlar faolligi o‘zgarishi
Saqlangan boshqaruv tizimi va mos kontekst
Har bir AMPK aktivatori tana vaznini pasaytiradi deb
Malonil-CoA
CPT1 ingibirlanishini boshqarish
Mahalliy jamlanmaning shu to‘qima uchun ahamiyati
Eng past konsentratsiya doim optimal deb
Karnitin
Atsil guruhlarini tashish va atsetil jamlanmasini buferlash
Hujayra ichidagi mavjudlik va saqlangan tashish yo‘llari
Plazma darajasining ortishi mushakni yuklaydi deb
Mashq
ATP ehtiyoji va uzoq moslashuv
Mos intensivlik va tiklanish
Yog‘ oksidlanishi maksimumi foyda maksimumiga teng deb
Keyingi oksidlanish va nafas
Oqim yakunlanishi va kofermentlar tiklanishi
Kislorod yetkazilishi, ferment quvvati va ATP ishlatilishi
CPT1 tezlashishi har qanday keyingi cheklovni yo‘q qiladi deb
13. Mikrobiota, karnitin va TMAO
13.1. Bir metabolitga bir nechta mikrob yo‘li olib keladi
Qabul qilingan karnitinning hammasi odam to‘qimalariga yetmaydi. Ichak mikroorganizmlariga ochiq qismi trimetilamin, TMA, hosil bo‘lishida qatnashishi mumkin; so‘rilgach u asosan jigar FMO3 si orqali trimetilamin-N-oksid, TMAO, ga oksidlanadi. Javob kattaligi mikrob tarkibi va fermentlari, substrat mavjudligi, jigar funksiyasi va buyrak chiqarishiga bog‘liq. Shu sababli karnitinning bir xil dozasi bir xil TMAO konsentratsiyasini berishi shart emas.
Karnitinning bevosita aylanishi uchun kislorodga bog‘liq tizimlar, jumladan CntA/B tasvirlangan. Yo‘g‘on ichak sharoitlari uchun ayniqsa muhim anaerob ketma-ketlik ham bor: avval γ-butirobetain hosil bo‘ladi, keyin boshqa mikroorganizmlar uni TMA ga aylantirishi mumkin. Rajakovich va hamkasblari Emergencia timonensis dagi yo‘l va unga tegishli bbu genlar klasterini aniqladi. Bu ko‘p bosqichli ferment kimyosi bo‘lib, uni γ-butirobetainning oddiy degidratlanishi haqidagi tasdiqlanmagan reaksiyaga keltirib bo‘lmaydi.
Oqimning soddalashtirilgan yozuvi: karnitin → γ-butirobetain → TMA → TMAO. U uglerod skeleti va trimetilammoniy guruhi almashinuvi yo‘nalishini ko‘rsatadi, ammo bitta reaksiyaning tenglashtirilgan tenglamasi emas. Jigar bosqichi uchun TMA + NADPH + H⁺ + O₂ → TMAO + NADP⁺ + H₂O deb yozish mumkin. Bu yerda NADPH qaytaruvchi ekvivalentlarni beradi, kislorod esa monooksigenaza reaksiyasiga kerak; buni anaerob mikrob tarmog‘idan farqlash zarur.
13.2. Odamdagi assotsiatsiyalar va tajribadagi sababiyat
Koeth va hamkasblari odamdagi karnitin aylanishi tadqiqotlarini hayvon tajribalari bilan birlashtirdi. Mikrobiota javobi ovqatlanish odatlari turli qatnashuvchilarda farqlangan, hayvon modellari esa yo‘lning aterosklerozga ta’sirini o‘rganishga imkon bergan. Biroq odatiy oziqlanish kategoriyasi tegishli mikroorganizmlar yo‘qligi yoki TMAO hosil bo‘lishining to‘liq to‘xtashini kafolatlamaydi. Tanlangan ratsionning sichqondagi ta’sirini qo‘shimcha foydalanuvchisining infarkt chastotasiga ham avtomatik ko‘chirib bo‘lmaydi.
Odam kohortalarida yuqoriroq TMAO ortgan yurak-qon tomir xavfi bilan bog‘langan. Ayni vaqtda uning darajasi o‘zlari ham prognoz bilan bog‘liq buyrak funksiyasi, ratsion va boshqa xususiyatlarga bog‘liq. Trombotsit va hayvon tajribalari biologik ta’sir, jumladan trombotsit reaktivligi ortishi imkonini qo‘llaydi, ammo har bemor uchun xavfsiz karnitin dozasini aniqlamaydi. Assotsiatsiya, eksperimental mexanizm va uzoq klinik aralashuv natijasi xulosaning alohida qatlamlari bo‘lib qolishi kerak.
Hayvon modellarida lipid qabul qiluvchi makrofag retseptorlari, jumladan CD36 o‘zgarishi, ko‘pikli hujayralar hosil bo‘lishi va xolesterinning teskari tashilishi ham muhokama qilinadi. Bu tarmoqlar xolesterinning to‘qimalar orasida harakati haqida mexanistik savollar qo‘yishga yordam beradi. Retseptor yoki ferment ifodalanishi o‘zgarishi odamda butun yo‘l to‘liq o‘chishini anglatmaydi. Shu sababli ularni tomir assotsiatsiyalari va trombotsit ta’sirlarini alohida saqlab, eksperimental o‘rganilgan jarayon sifatida ko‘rsatish kerak.
Bu adabiyotdan odam karnitinni to‘xtatishi kerak bo‘lgan universal «6–10 mkmol/l» klinik chegara kelib chiqmaydi. Qiymatlar turli tanlanmalarda turlicha taqsimlanadi, bitta o‘lchov esa barcha xavfni tasvirlamaydi. Yuqori qiymatni faqat qizil go‘sht yoki kapsula miqdori bilan tushuntirishga urinib, buyrak klirensini e’tiborsiz qoldirish ayniqsa noo‘rin. Metabolit ahamiyatini bu bog‘liqliklarni saqlagan holda tadqiqot va klinik kontekstda muhokama qilish ma’qul.
13.3. DMB oziq tavsiyasi emas, eksperimental vosita
Wang va hamkasblari 3,3-dimetil-1-butanol, DMB, dan mikrob TMA ishlab chiqarishini mikroorganizmlarni o‘ldirmasdan bostirishni o‘rganish uchun foydalangan. Ishda ferment va mikrob tizimlari, shuningdek sichqon ateroskleroz modellari bo‘lgan. Bu mikrobiotani butunlay yo‘q qilmay uning metabolizmiga aralashish tamoyilini ko‘rsatgan. Ammo shu tizimlardagi tadqiqot samarasi bemorlardagi xavfsizlik va davolash foydasini isbotlamaydi.
Spetsifiklik ayniqsa muhim: o‘sha ishda DMB CntA/B tizimini ingibirlamagan. Mualliflar boshqa ferment tizimlari va ayrim mikrob sharoitlarida TMA hosil bo‘lishiga ta’sir kuzatgan. Demak, uni karnitin aylanishining barcha yo‘llari universal raqobatli blokatori sifatida yoki tasdiqlanmagan «80–90% bostirish» yorlig‘i bilan ko‘rsatib bo‘lmaydi. Sxemada eksperimental sezgir tizimlarga ta’sir ko‘rsatilgan, anaerob tarmoq esa avtomatik bloklangan deb e’lon qilinmagan.
Birikmaning oziq mahsulotlarda topilishi ularni odatiy iste’mol qilib samarali va xavfsiz doza olish imkonini bermaydi. Bu sarimsoq, moy, vino yoki resveratrolni TMAO ga bog‘liq hodisalarning isbotlangan profilaktikasiga ham aylantirmaydi. Bunday da’volarga tegishli mahsulot, doza va klinik natijaning bevosita tadqiqotlari kerak. Ularsiz DMB yonida oziqlarni sanash ma’lumotlar bermaydigan tayyor yechim taassurotini yaratadi.
13.4. Karnitinning foydasi va cheklovlarini qanday muhokama qilish kerak
Vaziyat
Dalil asosida nima deyish mumkin
Nima tavsiyaga aylanmaydi
Tasdiqlangan birlamchi karnitin yetishmovchiligi
O‘rinbosar davoning aniq tibbiy maqsadi bor
TMAO haqidagi mexanistik xavotirning o‘zi sabab zarur davoni to‘xtatish
Vazn yoki sportga qiziqqan sog‘lom odam
Ta’sir maqsad va protokolga bog‘liq; universal afzallik aniqlanmagan
Majburiy uzluksiz qabul yoki standart kurs
Buyrak disfunksiyasi yoki yuqori yurak-qon tomir xavfi
Klinik kontekst, chiqarish va tayinlash sababi muhim
Bitta TMAO chegarasidan xavfni mustaqil hisoblash
Karnitinni DMB yoki o‘simlik mahsuloti bilan qo‘shish g‘oyasi
Alohida o‘rganishni talab qiladigan tadqiqot farazi
DMB, sarimsoq yoki resveratrolni isbotlangan «antidot» deb olish
L-karnitin o‘rniga ALCAR tanlash
Shakllar aylanishi va o‘rganilgan ko‘rsatmalari turli
Mikrob TMAO hosil bo‘lishining kafolatli bartaraf etilishi
Qisqa almashinuvchi kurslar
Rejim o‘zgarishi kerakli natija dalilini talab qiladi
Foyda va noaniqlik balansi molekulaning yagona umumiy bahosi emas, ko‘rsatma bilan belgilanadi. Aniqlangan yetishmovchilikni davolash va sog‘lom odam ish qobiliyatini yaxshilashga urinishning kutiladigan foydalari farqli. Laboratoriya ko‘rsatkichiga muvaffaqiyatli ta’sir klinik natijani almashtirmaydi, eksperimental xavf esa davoni to‘xtatishning tayyor qoidasini bermaydi. Amaliy muhokama tayinlash sababi, mavjud dalillar va aslida qanday natija kerakligidan boshlanadi.
Yog‘ kislotalari oksidlanishi o‘sma hujayralariga oziq moddalarning cheklanishi va boshqa metabolik stresslarni yengib omon qolishga yordam berishi mumkin. Ayrim modellarda CPT1A yoki bog‘liq yo‘llar energiyani saqlash va moslashuvda qatnashadi, ammo bog‘liqlik o‘smalar orasida bir xil emas. Zaugg va hamkasblari CPT1C ni o‘rganib, stress sharoitida hujayra omon qolishi va o‘sma o‘sishi bilan aloqa ko‘rsatdi. Natija eksperimental bog‘liqlik bilan klinik isbotlangan nishon farqini saqlab, CPT1C vazifalarini neyronlardan tashqariga kengaytiradi.
Oqsil ifodalanishi yuqoriligi uni ingibirlash o‘smani o‘ldirishini isbotlamaydi. Omon qolishni cheklaydigan reaksiya yoki boshqaruv vazifasini aniqlab, normal to‘qima ta’sirlaridan ajratish kerak. Genetik olib tashlash, ifodalanishni bostirish va kichik molekulali birikma ta’siri har xil natija berishi mumkin. Ayniqsa CPT1C uchun o‘smaga qarshi ta’sirni uzun zanjirli yog‘ kislotalarini mitoxondriyaga kiritishning odatiy reaksiyasini bloklashga oldindan bog‘lab bo‘lmaydi.
14.2. Etomoksir va nishondan tashqari ta’sirlar muammosi
Etomoksir CPT1 ning eksperimental ingibitori sifatida keng ishlatilgan. Uni qo‘llash konsentratsiya, ta’sir vaqti, hujayra modeli va CoA holatiga e’tibor talab qiladi. Divakaruni va hamkasblari yuqori konsentratsiyadagi makrofaglarning ayrim ta’sirlari CoA gomeostazi buzilishi bilan tushuntirilishini va yog‘ kislotalari oksidlanishini bloklashga keltirilmasligini ko‘rsatdi. Shu sababli preparatdan keyin hujayra o‘lishi yoki fenotip o‘zgarishi o‘zi CPT1 ga bog‘liqlik dalili emas.
Bu cheklov metabolik nishonlar haqidagi barcha adabiyot uchun metodologik muhim. Yetarli selektiv sharoitda genetik aralashuv, oqim o‘lchovi va farmakologik ta’sir kombinatsiyasi qo‘llagan xulosa ishonchliroq. Hatto bunday kombinatsiya hali bemor uchun terapevtik oraliq va foydani bildirmaydi. Etomoksirni tadqiqot vositasidan vazn tuzatish yoki saraton davosiga tavsiyaga aylantirmaslik kerak.
14.3. Turli metabolik dorilarni bitta mexanizmga birlashtirib bo‘lmaydi
Teglikar, yoki ST1326, eksperimental tadqiqotlarda CPT1A ga ta’sir qiladigan birikma sifatida ishlab chiqilgan. Pergeksilin miokard metabolizmini o‘zgartira oladigan antianginal vositalar orasida muhokama qilinadi, qo‘llanishi esa dori ekspozitsiyasi va toksiklik bilan bog‘liq. Koronar operatsiya oldidagi randomizatsiyalangan ish kutilgan miokard himoyasini topmagan; bu uning CPT1 orqali harakatining oddiy modelini qo‘shimcha cheklaydi. Bu yo‘nalishlar substrat almashinuvini boshqarishga qiziqishni ko‘rsatadi, lekin har bir birikma uchun nishon, dozaga bog‘liq ta’sir va klinik natijaning o‘z ma’lumoti kerak.
Ranolazinni alohida ko‘rish zarur. Birlamchi elektrofiziologik tadqiqotlarda uning ta’sirlari ion toklariga, jumladan kech natriy tokiga bog‘langan. «Metabolik antianginal dori» umumiy g‘oyasiga qarab uni CPT1 ning bevosita ingibitori deyish noto‘g‘ri. Fiziologik natija, farmakologik sinf va bevosita molekulyar nishon o‘zaro almashtiriladigan tushunchalar emas.
Yondashuv
Tadqiqot yoki klinik kontekst
Talqinning asosiy cheklovi
Etomoksir
CPT1 va yog‘ kislotalari oksidlanishiga eksperimental aralashuv
Yuqori konsentratsiyada CoA va boshqa jarayonlarga ta’sir sezilarli
Teglikar / ST1326
CPT1A ga aralashuv tadqiqotlari
Eksperimental selektivlik keng klinik qo‘llanishni belgilamaydi
Pergeksilin
Ayrim klinik kontekstlardagi metabolik antianginal davo
Ekspozitsiya, toksiklik va aniq ko‘rsatma dalili zarur
Ranolazin
Antianginal va elektrofiziologik ta’sirlar
Kech Na⁺ tokini «CPT1 bevosita ingibirlanishi» yorlig‘iga almashtirib bo‘lmaydi
Taxminiy CPT1 aktivatorlari
Oksidlovchi oqimni oshirish yo‘llarini izlash
Import ortishi keyingi oksidlanish va ATP ehtiyoji bilan muvofiq bo‘lishi kerak
14.4. Faollashtirish ham oqimlarni muvofiqlashtirishni talab qiladi
Steatoz yoki insulinga rezistentlikda qarama-qarshi strategiya — oksidlanishni kuchaytirib lipid to‘planishini kamaytirish — jozibador. Biroq hujayraning bir necha cheklovi bor va CPT1 doim asosiy emas. Yog‘ kislotalari yetkazilishi, mitoxondrial massa, trikarboksil kislotalar sikli va nafas o‘zgarishi bir xil aralashuv ta’sirini o‘zgartirishi mumkin. Shu sababli davolash maqsadi kirish fermentining doimiy maksimal faolligi emas, muvofiq almashinuvni tiklashdir.
15. Monografiyani amaliy o‘qish
15.1. Klinik va laboratoriya talqini uchun
Savol gipoglikemiya, yetarli bo‘lmagan ketogenez yoki qaytalanuvchi rabdomiolizga tegishli bo‘lsa, tashish tizimi sxemasi to‘g‘ri diagnostik mantiqni tanlashga yordam beradi. Karnitin, CPT1A, CACT, CPT2 va keyingi β-oksidlanish fermentlari yetishmovchiligini farqlash muhim. Bir xil shikoyat bitta to‘siq nuqtasini ko‘rsatmaydi, bitta atsilkarnitinning ortishi yoki kamayishi to‘liq profil va klinik tarixni almashtirmaydi. Namuna olingandagi holat, ochlik yoki yuklama bilan aloqa va genetik tasdiq ayniqsa muhim.
Insulinga rezistentlikni o‘rganishda ortiqcha substrat yetkazilishi, to‘liq bo‘lmagan oksidlanish va buzilgan lipid signalini ajratish foydali. Atsilkarnitinlar oqim holati haqida ma’lumot berishi mumkin, ammo «mitoxondrial ortiqcha yuklanish» universal tashxisi emas. RER o‘lchash sharoitidagi butun tana gaz almashinuvini tasvirlaydi, muayyan to‘qimadagi CPT1 faolligini o‘lchamaydi. Bu ajratish bitta chiroyli sxemadan tashxis va davo chiqarishga urinishning oldini oladi.
15.2. Oziqlanish, mashq va tadqiqotlarni baholash uchun
Qo‘shimchalarni muhokama qilishda avval odam maqsadi va boshlang‘ich holati so‘raladi. Tasdiqlangan yetishmovchilikni to‘ldirish, uzoq mushak yuklash va tana vazniga kichik o‘rtacha ta’sir izlash turli vazifalar. Har biri mos tadqiqot dizayni va mos yakuniy nuqtani talab qiladi. Molekula yog‘ tashilishida qatnasha olishi qo‘shimcha kirish shu vazifalarning birortasini yaxshilashini isbotlamaydi.
Yangi ishni o‘qishda kompartament, o‘lchangan oqim, model va natijani ketma-ket aniqlash qulay. Keyin sababiyat mustaqil usullar bilan qo‘llanganmi va sharoit taxminiy qo‘llanishga qanchalik mosligini belgilash kerak. Liposoma natijasi tashish qobiliyatini, sichqon natijasi muayyan fiziologik model ta’sirini, randomizatsiyalangan klinik tadqiqot esa muayyan aralashuvning tanlangan natijaga ta’sirini belgilaydi. Bu ketma-ketlikni saqlash chuqur biokimyodan muddatidan oldingi klinik xulosalarsiz foydalanishga imkon beradi.
CPT1 lipid mavjudligi bilan ularning mitoxondrial ishlatilishi orasida muhim o‘rin tutadi. Biroq karnitin tashish tizimi malonil-CoA boshqaruvi, matriks CoA si, β-oksidlanish fermentlari va nafas tizimi bilan birga ishlaydi. Normal funksiya oqimlarni to‘qima vazifasiga mos o‘zgartira olish bilan belgilanadi. Aynan muvofiqlik va moslashuvchanlik, har lahzadagi maksimal yog‘ oksidlanishi emas, bu tizim molekulyar mexanizmlarini amaliy ahamiyatga bog‘laydi.
Tez-tez beriladigan savollar
CoA tashuvchisi mavjud bo‘lsa, karnitin tizimi nega kerak?
SLC25A42 CoA ning o‘zini tashiydi, tizim esa uzun zanjirli atsil guruhini yetkazadi. CPT1 uni tashqi CoA dan olib karnitinga o‘tkazadi, CPT2 esa matriks CoA si bilan bog‘laydi. Bu turli tashish vazifalari.
CPT1A, CPT1B va CPT1C bir reaksiyani bajaradimi?
CPT1A va CPT1B kanonik mitoxondrial tizimda qatnashadi. CPT1C asosan neyronlarning endoplazmatik retikulumida o‘rganiladi, zaif yoki aniqlanmaydigan katalitik faolligi esa modelga bog‘liq. Neyron signal vazifalarini universal klinik mexanizmga aylantirish mumkin emas.
CPT1 kuchayishi doimo yog‘ ishlatilishini yaxshilaydimi?
Substrat kirishi β-oksidlanish, trikarboksil kislotalar sikli, nafas imkonlari va ATP sarfiga mos bo‘lishi kerak. Nomuvofiq oqimda oraliq mahsulotlar to‘planishi mumkin. Shu sababli atsil guruhlari ko‘proq kirishi to‘liqroq oksidlanish yoki insulinga sezgirlik yaxshilanishini kafolatlamaydi.
Nega palmitat oksidlanishida 106 ATP ko‘rsatiladi?
Bu NADH uchun P/O = 2,5 va flavin qaytaruvchi ekvivalentlari uchun 1,5 dagi hisob. To‘liq oksidlanish 28 + 80 ATP ekvivalenti beradi, ulardan faollashtirish uchun 2 ayiriladi. Tirik to‘qimadagi haqiqiy bog‘lanish o‘zgaradi.
Plazma va mushak ichidagi jamlanmalar farqli. Hujayra qabul qilishi OCTN2 ga bog‘liq, uzoq mushak yuklash protokolini qondagi konsentratsiyani bir martalik oshirish bilan almashtirib bo‘lmaydi. Tadqiqotlarda oziqlanish sharoiti, davomiylik va to‘qima jamlanmasining bevosita o‘lchovi muhim.
Karnitin ozishning universal vositasi sifatida isbotlanganmi?
Metatahlil muayyan tadqiqotlarda tana vaznining mo‘tadil o‘rtacha farqini topgan. Bu bir xil individual ta’sir yoki yog‘ foizining tasdiqlangan kamayishi degani emas. Ko‘rsatma, boshlang‘ich holat va tanlangan natija amaliy ahamiyatni belgilaydi.
FatMax ni VO₂max foizining umumiy formulasi bilan aniqlash mumkinmi?
Guruh o‘rtachasi individual natija emas. FatMax test sharoitiga bog‘liq va odamlar orasida sezilarli tarqoqlikka ega. Bir testdagi yog‘ oksidlanishi maksimumi oylar davomida yog‘ massasi yo‘qolishini ham belgilamaydi.
CPT1A P479L varianti doimiy ketogenezni bildiradimi?
Yo‘q: pasaygan faollik va malonil-CoA ga sezgirlik birga bo‘lishi mumkin. Gomozigot bolalar ishida ochlikka ketogen javob cheklanishi aniqlangan. Populyatsion tarqalish va tanlanish farazi individual tibbiy xavfni bekor qilmaydi.
TMAO ni bloklash uchun DMB yoki sarimsoq olish mumkinmi?
DMB tadqiqotlari eksperimental tizimlarda o‘tkazilgan va bemor davolash rejimini belgilamaydi. Birlamchi ishda DMB CntA/B ni bostirmagan. Oziq mahsulotida qandaydir birikma borligining o‘zi uni isbotlangan «antidot» qilmaydi.
TMAO har ortganda karnitinni to‘xtatish kerakmi?
Bitta TMAO qiymati davoning foyda va xavfini belgilamaydi. Buyrak funksiyasi, ratsion, tayinlash sababi va klinik kontekst muhim. Tasdiqlangan birlamchi yetishmovchilikni to‘ldirishning kutiladigan foydasi sport uchun ixtiyoriy qo‘shimchadan boshqacha.
Yuqori atsilkarnitin darajasi nimani ko‘rsatadi?
U almashinuv intensivligi, alohida bosqich cheklovi yoki irsiy tashish buzilishini aks ettirishi mumkin. Talqin to‘liq profil, o‘lchash payti holati va klinik sharoitni talab qiladi. Bitta ko‘rsatkich universal mitoxondrial toksiklikni isbotlamaydi.
Ranolazin CPT1 ning bevosita ingibitorimi?
Uning elektrofiziologik ta’sirlari kech natriy tokini ham qamragan ion toklariga bog‘lanadi. Metabolik antianginal dori umumiy nomi bevosita nishonni belgilamaydi. Shu sababli CPT1 ni uning ta’sirining universal izohi deb ishlatib bo‘lmaydi.