
SIRT3: митохондриядағы деацетилдену және алмасу
SIRT3 NAD⁺-ты, ақуыз ацетилденуін, май қышқылдарының тотығуын және редокс-қорғанысты қалай байланыстырады: құрылымы, нысаналары және адам еміне көшірудің шегі.
SIRT3 NAD⁺-ты, ақуыз ацетилденуін, май қышқылдарының тотығуын және редокс-қорғанысты қалай байланыстырады: құрылымы, нысаналары және адам еміне көшірудің шегі.
SIRT3 NAD⁺ қолжетімділігін митохондриялық ақуыздардың күйімен байланыстырады. Ол лизиннен ацетил топтарын алып тастап, май қышқылдарының тотығуына, кетогенезге, тыныс алуға және антиоксиданттық жүйелерге әсер етеді. Алайда ацетилденудің кең таралуы ферменттердің жаппай өшуін білдірмейді, ал гені жойылған тышқанның фенотипі қоспаны «митохондрияны қайта іске қосудың» дәлелденген құралына айналдырмайды. SIRT3 қызметін түсіну үшін модификацияның химиялық мүмкіндігін, өзгерген молекулалардың үлесін, нақты нысананы және дәлел деңгейін бірге қарастыру қажет.
Тыныс тізбегі протондарды матрикстен шығаратындықтан, оның ортасы әдетте цитозольден сілтілірек болады. Пируват пен май қышқылдары тотыққанда мұнда ацетил-КоА да түзіледі. Лизиннің протонданбаған ε-амин тобы ацетил-КоА тиоэфиріне шабуыл жасай алады:
Wagner мен Payne матрикс ортасын қайталайтын жағдайларда ақуыздардың ферментсіз ацетилденуі мен сукцинилденуінің дозаға және уақытқа тәуелді екенін көрсетті. Бұл химиялық жолды қолдайды, бірақ тірі ағзадағы жекелеген модификациялардың ферменттік реттелуін жоққа шығармайды. pH, ацетил-КоА және ақуыз концентрациялары тінге, тамақтануға әрі әдіске байланысты; бір тұрақты сандар жиынтығы барлық митохондрияны сипаттамайды.
Қолжетімді амин топтарының үлесі жергілікті pKₐ-ға тәуелді:
pKₐ шамамен 10,5 болатын бос лизин үшін pH 8 кезінде бұл үлес шамамен 0,3%; молекулалардың көпшілігі емес. Жекелеген қалдықтардың айналасы pKₐ мен реакцияға қабілеттілікті өзгерте алады. Макромолекулалардың тығыз орналасуы қолжетімділік пен өзара әрекетке әсер етеді, бірақ барлық реакцияның бірдей жылдамдауын дәлелдемейді.
Ацетилдену лизиннің оң зарядын бейтараптап, кофактордың, субстраттың немесе мембрананың байланысуын өзгертуі мүмкін. Бірақ масс-спектрометрияда модификация орнын анықтау өзгерген молекулалардың үлесін не жалпы ағынның өзгеруін автоматты түрде ашпайды. Алғашқы протеомдық зерттеулер көптеген митохондриялық нысананы тапты; бұл «ақуыздардың 60–65%-ында стехиометриялық маңызды белгілер бар» немесе «40–90% тежелу» деген әмбебап тұжырымдарды бекітпейді.
2015 жылы Weinert және әріптестері тышқан бауырында стехиометрияны өлшеп, митохондриялық ацетилдену орындарының көпшілігінде модификация үлесі төмен екенін анықтады. SIRT3 өз нысаналарының модификациясын әсіресе төмен деңгейге жеткізді, ал мұндай орындардың көбі ашығу кезінде аз өзгерді. Бұл жекелеген функционалдық маңызды қалдықтарды реттеумен қатар зақымды түзету моделін қолдайды. «Ацетилом салдануы» тым кесімді: әсердің бағыты мен ауқымын әр ақуыз үшін анықтау керек.
Сүтқоректілердің жеті сиртуині NAD⁺-тәуелді катализ қағидасын бөліседі, бірақ субстраттары мен таралуы өзгеше. SIRT1 мен SIRT2 негізінен митохондриядан тыс жұмыс істейді, SIRT6 мен SIRT7 ядролық үдерістерге қатысады. SIRT3 — негізгі митохондриялық деацетилаза; Sirt3 жоғалғанда көптеген тіннің ақуыздары айқын гиперацетилденеді. Бұл SIRT4 пен SIRT5 маңызсыз немесе олардың қызметтері мүлде қабыспайды дегенді білдірмейді.
| Қасиет | SIRT3 | SIRT4 | SIRT5 |
|---|---|---|---|
| Негізгі мамандануы | Лизиннің ацетил топтарын алып тастау | Бірнеше деацилдену реакциясы, соның ішінде липоамидаза белсенділігі; АДФ-рибозилдену арқылы реттелу де сипатталған | Десукцинилдену, демалонилдену және деглутарилдену |
| Нысана мысалдары | AceCS2, LCAD, IDH2, SOD2 | PDH кешенінің липоилденген DLAT құрамбөлігі | CPS1 және дикарбоксилді ацил топтары бар басқа ақуыздар |
| Модификацияның маңызы | Заряд, катализдік түйісулер және тұрақтылық | Липоамид кофакторын алып тастау PDH ағынын төмендетуі мүмкін | Теріс зарядты ацил белгілерінің өзгеруі |
| Салыстыру шегі | Әсер орынға және стехиометрияға байланысты | Бір ғана тежеу қызметімен шектелмейді | Әлсіз деацетилдену белсенділік жоқ дегенді білдірмейді |
Mathias және әріптестері SIRT4 липоамидаза белсенділігін, ал Du және әріптестері SIRT5-тің сукцинил және малонил топтарына басымдығын көрсетті. SIRT5-тегі Arg105 пен Tyr102 осы топтарды тануға көмектеседі; тирозинді кәдімгі оң зарядты қалдық деп сипаттауға болмайды. Пептид пен жағдайды көрсетпей, «ацетилденген лизинге» әмбебап Kₘ мәнін беру ақпаратсыз.
Адамның SIRT3 гені 11p15.5 аймағында орналасқан; экзондар мен балама транскрипттерді сипаттау нақты аннотацияны қажет етеді. Толық ұзындықтағы түрі 399 аминқышқылдан тұрады және массасы шамамен 44 кДа. N-соңындағы бөлікте сыртқы және ішкі мембраналардың импорт жүйелері танитын митохондриялық сигнал бар. Амфипатиялық бағыттау тізбегі, TOM/TIM және матрикс шаперондары мембраналық потенциал мен энергиямен қамтамасыз етілген импортты қажет ететін жолға қатысады.
Schwer-дің 2002 жылғы жұмысы матрикстегі орналасуды, шамамен 28 кДа өнімге дейін өңделуді және MPP әсерінен кейінгі белсенуді көрсетті; Arg99/Arg100 мутациясы өңделуді бұзды. Жетілген өнімнің массасы, кесілетін орын, транскрипт және кристалданған катализдік конструкцияның шекарасы — әртүрлі сипаттамалар. Сондықтан әр жасушада жетілген ақуызды жай ғана «142–399 қалдықтарымен» теңестіруге немесе барлық қысқа изоформаны қызметі бірдей деуге болмайды. Митохондриядан тыс ұсынылған ақуыз қорлары да, әсіресе артық экспрессия жағдайында, жеке дәлелді қажет етеді.
Катализдік өзекте үлкен Россман тәрізді домен және кішірек мырыш байланыстыратын домен бар. Құрылымдық Zn²⁺ цистеиндермен координацияланып, ақуыздың қатталуын сақтайды; ол металл кофакторы ретінде гидролизді катализдемейді. Ацетилденген пептид пен NAD⁺ домендер арасында байланысады; икемді элементтер байланысу кезінде қозғалады. Катализдік гистидин протон тасымалына қатысады, бірақ егжей-тегжейлі жолды тек статикалық құрылымнан шығару мүмкін емес.
Нақты PDB жазбалары әртүрлі: 3GLS — 2,70 Å ажыратымдылықтағы адам SIRT3; 4BV3 — EX-527 және NAD кешені, 2,00 Å; 4FVT ацетилденген ACS пептиді мен carba-NAD қамтиды, 2,47 Å. Соңғысы кәдімгі АДФ-рибозамен кешен емес. Carba-NAD — байланысуды зерттейтін аналог, ал ингибитор байланысқан құрылым кедергісіз катализдік айналымды сипаттамайды.
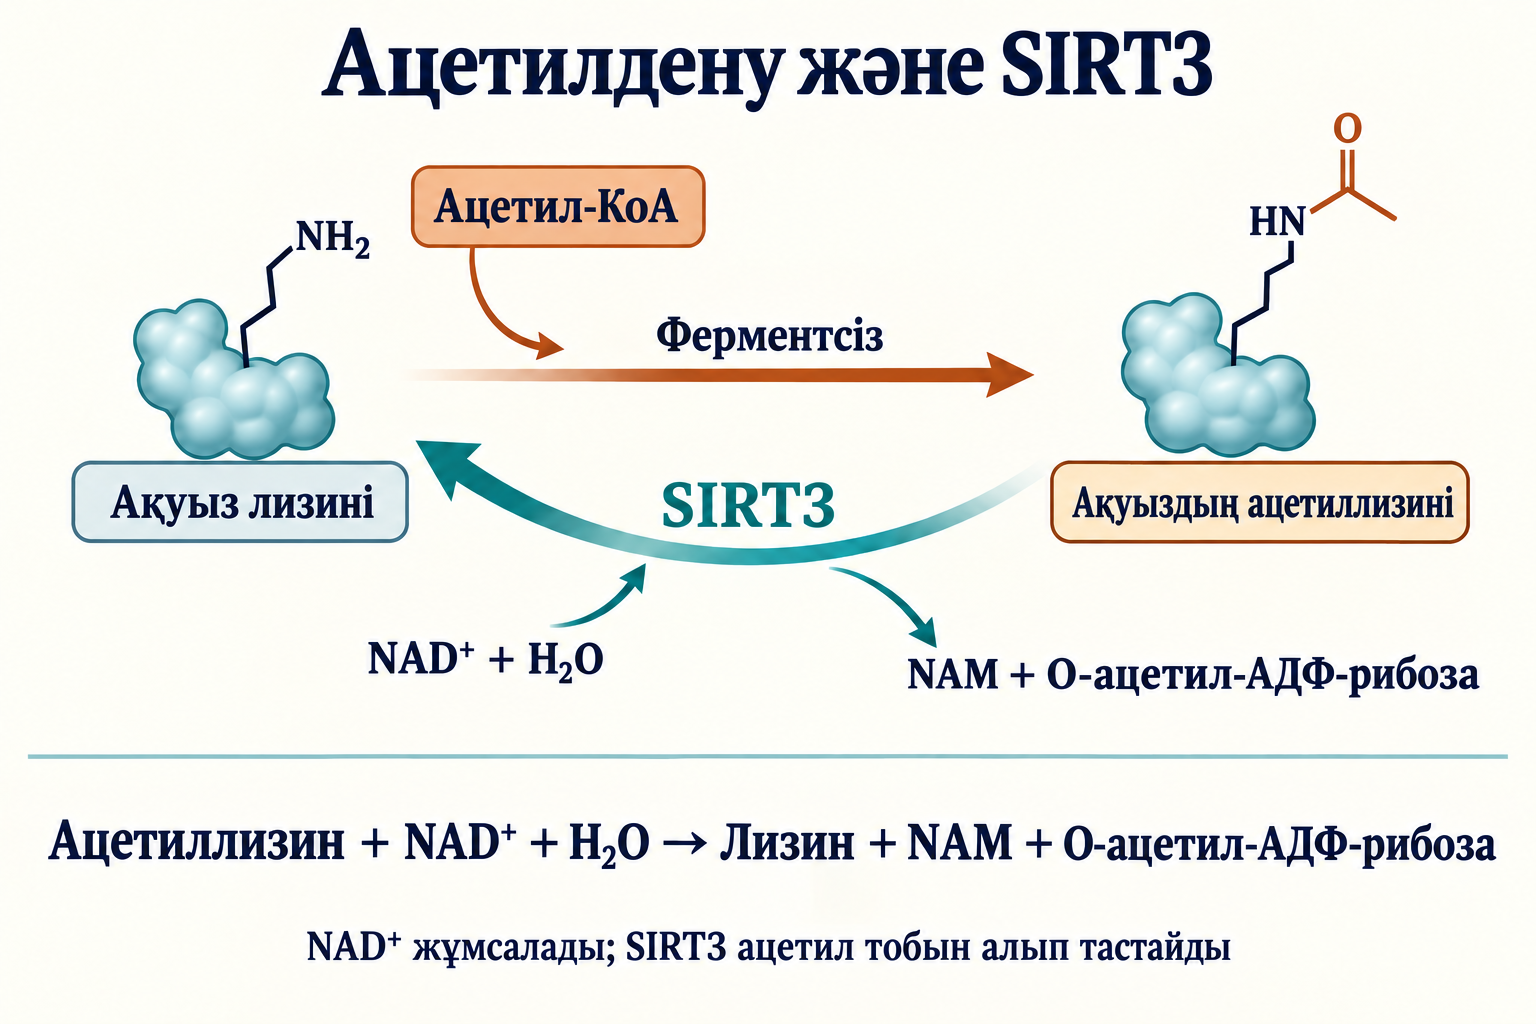
Жиынтық реакция ацетил тобын кофактордың АДФ-рибоза бөлігіне тасымалдайды:
NAD⁺ жай NADH-қа айналмайды, жұмсалады. Никотинамид пен рибоза арасындағы байланыстың үзілуі никотинамидті босатады; сабақтас аралық өнімдер деацетилденген ақуыз және негізінен 2′-O-ацетил-АДФ-рибоза түзеді, ол 3′-изомерге ауыса алады. Алкилимидаттық және циклдік аралық өнімдер механизмді сипаттауға көмектеседі, бірақ «кәдімгі қатаң Sₙ2 реакциясы» деген қарапайым түсінік талқыланатын диссоциативті сипатты және протон тасымалының ретін қамтымайды. OAADPR метаболит және ықтимал сигнал қатысушысы ретінде зерттеледі; оның түзілуі өздігінен нақты жүйелік әсерді бекітпейді.
Kong және әріптестері PGC-1α тышқан Sirt3 экспрессиясын ERRα байланыстыратын промотор элементі арқылы арттыратынын көрсетті. PGC-1α — коактиватор, ДНҚ-мен өздігінен байланысатын фактор емес. Зерттелген миотүтіктер мен гепатоциттерде ERRα азаюы индукцияны әлсіретті, ал SIRT3 ROS пен митохондриялық биогенез өзгерістеріне қатысты. Бұл экспрессия корреляциясынан күштірек дәлел, бірақ әр адам промоторының бірдей құрылымын бекітпейді.
AMPK, SIRT1 және PGC-1α энергетикалық күйді бейімделумен байланыстырады; PPARα липид алмасуын үйлестіреді. Фосфорлану, деацетилдену және ядролық рецепторлар әрекеті тін мен стимулға байланысты. Сондықтан араласудан кейін SIRT3 көбеюі PPARα-ның нақты ген аймағына тікелей байланысқанын дәлелдеуге тең емес. Ашығу, калорияны шектеу және жаттығу жауаптары мүшеге әрі уақытқа қарай өзгереді; ақуыздың әмбебап «үш-бес есе» көбеюі жоқ.
Реакция матрикстегі бос әрі қолжетімді NAD⁺-қа, ацетилденген субстрат пен никотинамид концентрациясына тәуелді. Пептидтік субстрат тұрақты болғанда жуық тәуелділік былай жазылады:
Бұл — шартты модель; екі субстратты реакцияның әр кезеңін сипаттамайды. Kₘ пептид пен әдіске байланысты; NAD⁺/NADH қатынасы кофактордың абсолютті концентрациясын алмастырмайды. NADH-тың in vitro ықтимал тежеуін негізгі физиологиялық қосқыш деп атамас бұрын шынайы концентрациямен және байланысумен салыстыру қажет.
2020 жылы Luongo және әріптестері SLC25A51 бүтін NAD⁺-ты сүтқоректілер митохондриясына тасымалдайтынын көрсетті. Оның жоғалуы жалпы жасушалық емес, митохондриялық NAD⁺-ты азайтып, тынысты бұзды және оқшауланған органеллалардың сіңіруін бөгеді. Демек, ішкі мембрана NAD⁺-ты мүлде өткізбейді әрі қор тек NMNAT3 арқылы толады деген тұжырымдар ескірген. Прекурсор алмасуын, тасымалды және жасушалық қорларды бөлек қарастыру керек.
Никотинамид катализдік қалтаға қайта кіріп, негіз алмасуына қатыса алады: аралық өнімнен NAD⁺-ты қайта түзіп, нәтижелі реакцияны баяулатады. Бұл — өніммен тежелу; белсенді орталықтан алыс классикалық аллостериялық байланысу болуы міндетті емес. IC₅₀ мен Kᵢ өзара алмастырылмайды және жағдайға тәуелді; тұрақты «30–50 мкМ» мәндерін және бір матрикстік аралықты барлық тінге таратуға болмайды. NAMPT → NMN → NAD⁺ қайта пайдалану жолы NAM-ды алып тастап, кофактор қорын толықтырады. Оның CD38 және PARP арқылы NAD⁺ жұмсалуымен байланысы кофактор алмасуын SIRT3-тің тікелей белсенуінен ажыратуға көмектеседі.
2010 жылы Hirschey және әріптестері Sirt3 гені жойылған тышқандарда LCAD Lys42 гиперацетилденуін, ашығуда май қышқылдарының тотығуы төмендеуін және аралық өнімдер жиналуын сипаттады. Lys318 мен Lys322-ні Bharathi 2013 жылы бөлек зерттеді: рекомбинантты LCAD-тың химиялық ацетилденуі субстрат байланысуын нашарлатты, ал SIRT3 белсенділікті ішінара қалпына келтірді. Бұл қалдықтар FAD координациялайтын элементтерге жақын орналасқан; авторлар конформациялық механизм ұсынды. Барлық нәтижені екі орынға және жалғыз 2010 жылғы жұмысқа телу дұрыс емес.
Ашыққан тышқандарда ATP төмендеп, суыққа төзімсіздік байқалды, бірақ сандық әсерлердің бәрін бір тұрақты төрт есе фермент белсенуіне біріктіруге болмайды. Түр айырмашылықтары да маңызды: адамның LCAD-ы тышқан LCAD-ының рөлін энергияны көп қажет ететін барлық мүшеде қайталамайды; адамның ұзын тізбекті май қышқылдарын тотықтыруында VLCAD әсіресе маңызды. VLCAD зерттеуі SIRT3/SIRT5-тің катализдік орындар мен кардиолипин байланысуына әсерін көрсетті. MCAD не VLCAD орындарының тізімін тиісті ақуыз дерегінсіз кеңейтуге болмайды.
CPT1–CACT–CPT2 карнитиндік тасымал жүйесі ұзын тізбекті ацил топтарын матрикске жеткізеді. Кіріс пен кейінгі тотығу сәйкес келмей, ацилкарнитиндер мен липид аралық өнімдері жиналуы мүмкін. Бұл липоуыттылықты түсіндіруге көмектеседі, бірақ SIRT3 жүйенің әр құрамбөлігін тікелей деацетилдейді дегенді дәлелдемейді. DAG, керамидтер, PKC және инсулин сигналдары бірнеше жолды қамтиды; IRS-1 Ser307 арқылы Akt толық өшетін әмбебап тізбек тым қарапайым және түрге тәуелді.
Митохондриялық AceCS2 тарихи атауы ACSS1-ге сәйкес келеді, ал қазіргі ACSS2 негізінен цитозольдік/ядролық ферментті білдіреді. 2006 жылы Schwer мен Hallows ацетил-КоА синтетазаларының ацетилденуге тәуелді реттелуін көрсетті. Lys642 адамның митохондриялық AceCS2 ферменті үшін маңызды: SIRT3 модификацияны алып тастап, фермент белсенділігін қалпына келтіреді.
Ацетат отын алмасуын қолдай алады, бірақ реакция энергияны қажет етеді және оны әмбебап «аса тиімді» қоректік затқа айналдырмайды. Тін жағдайы, ацетат қолжетімділігі және басқа жолдар бір қосқыштан маңыздырақ.
HMGCS2 кетогенездің негізгі кезеңдерінің біріне қатысады:
Shimazu және әріптестері SIRT3 болмағанда Lys310/Lys447/Lys473 гиперацетилденуін, ашығу кезіндегі деацетилденуді және модификация жойылғанда не тиісті алмастырулардан кейін белсенділік өсуін көрсетті. Гені жойылған тышқандарда ашығу кезінде β-гидроксибутират төмен болды. Бұл SIRT3 үлесін көрсетеді, бірақ онсыз кетогенез мүлде мүмкін емес дегенді білдірмейді. Кейінгі реакциялар ацетоацетат пен β-гидроксибутират түзеді; бауырда өндірілу және басқа тіндерде пайдаланылу — бөлек үдерістер.
SDH сукцинат тотығуын убихинон тотықсыздануымен байланыстырады: SDHA құрамында FAD, SDHB-де Fe–S орталықтары бар, SDHC/SDHD мембраналық бөлікті құрайды. II кешеннің өзі протон айдамайды. Cimen және әріптестері SDHA ацетилденуі мен белсенділігінің SIRT3-тәуелді өзгерістерін көрсетті. Бұл Lys179 арқылы бір әмбебап механикалық жолды немесе Sirt3 жоқ әр мүшеде онкогендік сукцинаттың міндетті жиналуын бекітпейді. Сукцинат өзгерісі α-кетоглутаратқа тәуелді диоксигеназаларға әсер етуі мүмкін, бірақ толық себептік тізбек бөлек тексерілуі тиіс.
IDH2 — матрикстегі NADP⁺-тәуелді фермент, NAD⁺-тәуелді IDH3-тен өзгеше:
Someya SIRT3, IDH2 белсенуі, NADPH/GSH және калория шектелген тышқандарда естудің қорғалуын байланыстырды. Yu 2012 жылы Lys413-ті арнайы зерттеді: ацетиллизинді нақты орынға енгізу рекомбинантты IDH2 белсенділігін күрт төмендетіп, SIRT3 оны қалпына келтірді. Бұл — нақты биохимиялық нәтиже; барлық митохондрияда NADPH әмбебап үш есе көбейеді деген сөз емес. Басқа NADPH көздеріне NNT, малик-ферменттер және сабақтас алмасу жолдары кіреді; NNT жай «транслоказа» емес, трансгидрогеназа.
Глутаматдегидрогеназа GLUD1 глутаматты, α-кетоглутаратты және аммонийді байланыстырады:
Schlicker SIRT3 арқылы GDH деацетилденуі мен белсенуін көрсетті. Анаплероз, аминқышқылдардың тотығуы және азот алмасуы байланысты, бірақ бөлінген аммоний — несепнәр циклінің субстраты; CPS1-дің негізгі аллостериялық активаторы N-ацетилглутамат. Нақты зерттеусіз SIRT3 Lys398 арқылы GTP-тың бүкіл тежеуін жояды немесе кез келген тамақтану жағдайында SIRT4 оның айнадағыдай антагонисі деуге болмайды.
2008 жылы Ahn Sirt3 гені жойылған тышқандардың кей мүшелерінде базалық ATP 50%-дан астам төмендегенін, I кешен құрамбөліктерінің ацетилденуі артқанын және SIRT3-тің NDUFA9-мен әрекеттесуін байқады. Қосылған фермент кешен белсенділігін арттыра алды. Бұл жалғыз Lys370 топсаны басқаратынын, бүкіл электрон ағып кетуін жоятынын немесе кері электрон тасымалын, RET-ті бөгейтінін дәлелдемейді. Ағын бағыты CoQ тотықсыздану күйіне, протон градиентіне және қолжетімді субстратқа да тәуелді.
ATP-синтаза протон градиентінің энергиясын ATP-қа айналдырады. Ротор мен шеткі тірек бірлесіп жұмыс істеуі керек; тарихи ATP5O деп аталған OSCP қазір жиі ATP5PO деп белгіленеді. Vassilopoulos-тың 2014 жылғы зерттеуі F₁ ақуыздарындағы SIRT3-тәуелді ацетил орындарын анықтап, OSCP Lys139-ды тамақтану және жаттығу стрессіне қатысты зерттеді. Міндетті «статордың босауы» және барлық жағдайда ATP-тың екі есе өндірілуі бұл нәтижелер шегінен шығады.
2016 жылы Yang және әріптестері SIRT3-тің бір бөлігі ATP-синтазамен байланысатынын көрсетті; матрикс pH-ының төмендеуі мен потенциалдың жоғалуы оның босауымен және матрикс ақуыздарының жылдам деацетилденуімен қатар жүрді. ATP5O His135 pH-тәуелді механизмде маңызды болды. Бұл барлық фермент әрдайым мембранаға байланысқан деген тұжырым емес, жасушалық әрекеттесу желісінің зерттеуі.
RCR белгілі күйлердегі тыныс жылдамдығын салыстырады, ал P/O фосфорланудың оттек алмасуымен түйісуін бағалайды. Екеуі де препаратқа, субстратқа, әдіске және күй анықтамасына байланысты. «Қалыпта 6–10» және «SIRT3 тапшылығында 2,5–3,5» тұрақты мәндері әмбебап диагностикалық шектер бола алмайды. SIRT3 биоэнергетикаға әсер етеді, бірақ протон ағып кетпейтініне кепілдік бермейді: реттелетін ажыраудың да физиологиялық қызметтері бар.
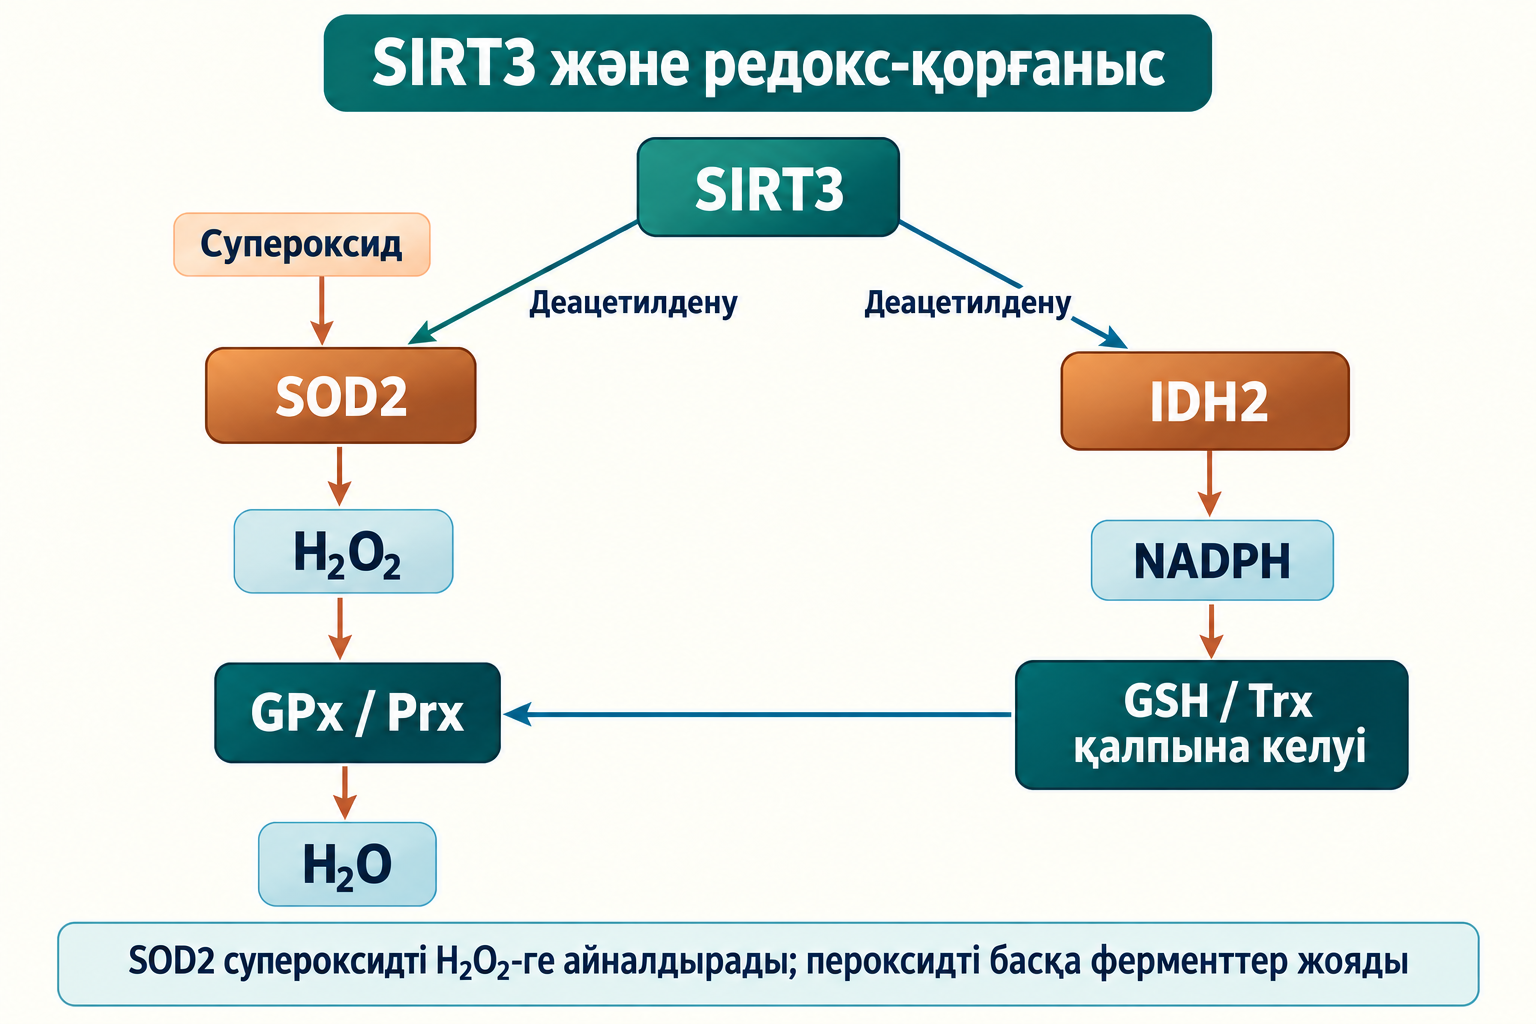
SOD2 Mn(III)/Mn(II) циклі арқылы супероксидті H₂O₂-ге айналдырады. Жиынтық реакция:
Tao Lys122-ні, Chen Lys68-ді, ал Qiu калорияны шектеу және SIRT3/SOD2 байланысын зерттеді. Бұл жұмыстар функционалдық реттелуді көрсетеді; әр тінде әмбебап он есе көбейткіш немесе белсенділіктің 80–90% жоғалуы емес. М⁻¹·с⁻¹ өлшеміндегі соқтығысу жылдамдығының тұрақтысы да с⁻¹ өлшеміндегі kcat емес. Марганецті SOD2 және оның катализі туралы мәліметтер жылдамдықтарды дұрыс салыстыруға қажет.
Супероксид азайғанда оның NO-мен бәсекелес реакциясы арқылы ONOO⁻ түзілуі төмендеуі мүмкін, бірақ ағын барлық қатысушының концентрациясы мен орналасуына тәуелді. Фермент мөлшерін ескермей екі бимолекулалық тұрақтыны салыстыру «жалғыз» қорғаныс механизмін немесе супероксидтің міндетті 10⁻¹¹ М шегін бекітпейді. Ақуыз нитрленуі, Fe–S зақымы және темірге тәуелді липид тотығуы мүмкін, бірақ SIRT3 әр жоғалғанда міндетті бірдей ферроптоз тізбегін құрамайды.
SOD2 пероксид түзетіндіктен, кейінгі қорғанысқа GPx пен Prx қажет. IDH2 және басқа жолдардан келген NADPH глутатионредуктаза мен тиоредоксинредуктазаны қолдайды; қалпына келген GSH пен Trx пероксидазалардың жұмысын қамтамасыз етеді. PRDX3/PRDX5 пен әртүрлі GPx-тің өз орналасуы және субстраттары бар; GPx4 липид гидропероксидтері үшін әсіресе маңызды. H₂O₂-ні үйлесімді жоймай дисмутацияны арттыру ROS-ты толық жою емес.
Hafner CypD Lys166 деацетилденуін және Sirt3 гені жойылған тышқандар кардиомиоциттерінің митохондриясында жасқа тәуелді mPTP ашылу сезімталдығын көрсетті; оны циклоспорин A тежеді. CypD өткізгіштікті реттейді, өзі жеткілікті дербес пора түзбейді. Ұсынылған ATP-синтаза мен ANT қатысуы бір түпкілікті архитектураны бекітпейді. Ашылу деполяризация, ісіну және өлім туғызуы мүмкін, бірақ бұл нәтижелер CypD-тің барлық әрекетін толық бөгеуді немесе инфаркттың әмбебап «60–80%» ұлғаюын дәлелдемейді. mPTP мен циклоспорин деректерін түсіну тәжірибелік реттелуді клиникалық кардиопротекциядан ажыратуға көмектеседі.
Sundaresan, Jacobs және Tseng SIRT3-тің FoxO3-пен әрекеттесуін және антиоксиданттық экспрессия өзгерісін сипаттады. Транскрипциялық фактордың тікелей деацетилденуін, орын ауыстыруын және жанама редокс сигналдарын ажырату керек: SIRT3-тің басым матрикстік орналасуы әр ядролық ақуызға шектеусіз жетуді білдірмейді. Тиісті тәжірибелерсіз бүкіл оське тұрақты Lys271/Lys290, міндетті MDM2 блокадасын немесе FoxO3 өмір сүру уақытының төрт есе ұзаруын телуге болмайды.
Жас Sirt3-нокаут тышқандары гиперацетилденуге қарамастан қалыпты рационда сау көрінуі мүмкін. Айқынырақ фенотиптер ашығу, майлы рацион, қартаю және стресс кезінде байқалады. Hirschey-дің 2011 жылғы зерттеуі майлы рационда семіру, инсулинге төзімділік, гиперлипидемия және стеатогепатиттің жылдам дамуын көрсетті. Бұл SIRT3 тапшылығын адам диабетінің әмбебап бастапқы себебі етпейді; MASLD пен стеатогепатит те кез келген майлы инфильтрацияның өзара алмастырылатын атаулары емес.
Hafner мен Sundaresan жүрек гипертрофиясын, фиброзды және стресс сезімталдығын зерттеді. Someya белгілі тышқан желісінде Sirt3 болмағанда калория шектеудің естуді қорғауы жоғалатынын көрсетті. Бұл нәтижелерді әр жануарға міндетті дилатациялық кардиомиопатия кестесіне немесе әмбебап 80% өлімге жинақтауға болмайды. Ишемиялық және нейрондық зақым модельдері әртүрлі нәтижені бағалайды; адамдағы ассоциация, генетикалық модельдеу және науқасты емдеу әртүрлі дәлелді қажет етеді.
Ісік модельдерінде SIRT3 ROS/HIF-1α-тәуелді қайта бағдарламалауды шектеп, митохондрияның тұрақтылығын қолдай алады. Kim мен Finley зерттелген жүйелерде ісікті басатын механизмдерді көрсетті. Басқа ісіктерде сақталған тотығу алмасуы мен стресс қорғанысы жасуша тіршілігін қолдауы мүмкін. Гипоксия, ROS, метаболиттер және пролилгидроксилазалар HIF тұрақтануының бірнеше жолын береді; оларды темірдің міндетті тікелей тотығуына қысқартуға болмайды. Осы екіжақтылық SIRT3-ті автоматты белсендіру не тежеудің орнына ісік түрі мен сатысына назар аударуды талап етеді. Ол NAD⁺-тың барлық прекурсорына бір клиникалық қарсы көрсетілім орнатпайды.
NR мен NMN NAD⁺ синтезіне қатысады; тікелей тасымалдың, NR/NAM-ға айналудың және әр мүшенің үлесі жағдайға байланысты. SLC12A8-ді адамның әмбебап дәлелденген жалғыз NMN тасымалдаушысы деп атауға болмайды. CD38 NAD⁺ пен сабақтас метаболиттерді жұмсайды, бірақ пробиркадағы тежелу апигенин қоспасының тінге жеткілікті жететінін және науқаста SIRT3 белсенділігін арттыратынын дәлелдемейді. 78c қосылысы бекітілген клиникалық қоспалар кешені емес, зерттеу тәсіліне жатады.
Elhassan-ның 2019 жылғы рандомизацияланған айқаспалы зерттеуінде 12 егде ер адам 21 күн бойы NR алды. Бұлшықеттегі NAD⁺ метаболиттері мен кей қабыну көрсеткіштері өзгерді, бірақ өлшенген митохондриялық биоэнергетика жақсармады. Бұл нәтиже автоматты қайта іске қосу уәдесінен пайдалырақ: ол адамның SIRT3 арқылы клиникалық тиімділігін емес, нақты әсер ету жағдайындағы метаболизм өзгерісін бекітеді.
Метформин мен берберин энергетикалық алмасуды және AMPK-пен байланысты сигналдарды өзгерте алады, бірақ SIRT3-тің селективті активаторлары емес. AICAR AMP-тәрізді ZMP-ға айналады; оны SIRT3-тің тікелей әмбебап аллостериялық дәрісі деу дұрыс емес. Ресвератрол, птеростильбен және гидрокситирозол сигнал модуляторлары ретінде зерттеледі; экспрессия өзгерісі катализдік доменмен тікелей байланысуды дәлелдемейді. Жануардағы тұрақты «80% және 1–2%» сандары адамның биожетімділігін дұрыс салыстырмайды. Шағын молекулалар әзірлеу селективтілік, нысанаға әсер ету және клиникалық нәтиже дәлелдерін қажет етеді.
Бұлшықет жұмысы мен тамақтану режимдері ATP қажеттілігін, отын ағынын және реттегіш экспрессиясын өзгертеді. HIIT, аэробтық жаттығу, TRE және FMD өзара алмастырылатын араласулар емес. «PGC-1α 2–4 сағатта, SIRT3 6–12 сағатта» деген тұрақты реттілік немесе бүкіл EPOC-ты LCAD деацетилденуімен түсіндіру тиісті режимге тікелей дәлелді қажет етеді. Жаттығу пайдасын мойындау үшін оның бәрін SIRT3 атқарады деп жорамалдау қажет емес.
2013 жылы Peek тышқандарда NAD⁺ синтезінің циркадтық тербелістері, ацетилдену, SIRT3 және митохондриялық тыныс арасында байланыс көрсетті. Бұл үлгі алу уақытын салыстыру үшін маңызды етеді, бірақ адамның NMN қабылдайтын оңтайлы сағатын немесе ашқарынға қабылдау қажеттілігін бекітпейді. Ашығу кезінде көптеген гормон мен субстрат бірге өзгереді, сондықтан кетоздың өзі бір деацетилаза белсенділігін өлшемейді.
NR/NMN, апигенин, берберин не метформин, птеростильбен, R-ALA, ацетил-L-карнитин, CoQ10, магний және зәйтүн сығындысын біріктіру әртүрлі араласуды қосады. Бұл комбинация үшін «SIRT3 тапшылығын» емдеудің клиникалық режимі, оңтайлы дозалар, өзара әрекеттер және ұзақмерзімді нәтижелер дәлелденбеген. Қоректік заттың қалыпты алмасудағы рөлі оны қосымша қабылдау тиісті ақуыздардағы модификацияны жоятынын көрсетпейді. Сондықтан қолжазбадағы дозалар мен кесте ем тағайындау ретінде берілмейді.
| Өлшем | Нені көрсетуі мүмкін? | Жеке өзі нені бекітпейді? |
|---|---|---|
| Ацилкарнитиндер | Май қышқылы тасымалы/тотығуының теңгерімі, рацион және алмасу бұзылыстары | LCAD немесе SIRT3-тің арнайы белсенуі |
| β-Гидроксибутират | Кетон өндірілуі мен пайдаланылуы, тамақтану күйі | HMGCS2 деацетилденуі немесе әмбебап 0,5–1,5 мМ емдік нысана |
| Лактат/пируват | Үлгі алу мен өңдеуді ескергендегі цитозольдік редокс жұбы | Тікелей матрикстік NAD⁺/NADH немесе I кешеннің нақты бір блокадасы |
| 8-OHdG | Тотығумен байланысты зақымның/өнім шығарылуының бір көрсеткіші | SOD2/IDH2-нің дәл SIRT3 арқылы қалпына келуі |
| GSH/GSSG | Дайындау кезінде тотығуға сезімтал белгілі үлгідегі редокс қор | Ағзадағы барлық митохондрияға ортақ бір күй |
Қарсы көрсетілімді бағалау нақты дәрі мен науқасқа қатысты. Мысалы, бүйрек қызметі бұзылғанда метформин шектеулерін барлық ингредиентке таратуға немесе «SIRT3 белсендірудің» қарсы көрсетілімі деуге болмайды. Онкологиялық механизмдер еммен әрекеттесуді зерттеуді талап етеді, бірақ нақты заттың клиникалық дерегін алмастырмайды. Бұл өлшемдер зерттеуде және тиісті диагностикада пайдалы; дербес «ацетиломды қайта іске қосу» тесті емес.
| Нысана немесе ось | Негізгі нәтиже | Қорытынды шегі |
|---|---|---|
| LCAD | 2010 жылғы жұмыста Lys42; 2013 жылғы рекомбинантты фермент жұмысында Lys318/322 | Орындар, препараттар және түрлік рөлдер әртүрлі |
| ACSS1/AceCS2 | Lys642 деацетилденуі ферментті белсендіреді | Қазіргі ACSS2-ден ажырату керек |
| HMGCS2 | Lys310/447/473, белсенділік және ашыққан тышқан кетондары | Бейімделуге үлес, кетогенездің жалғыз жолы емес |
| IDH2 | Lys413, белсенділік және NADPH қолдауы | NADPH-тың жалғыз көзі емес |
| SDHA және I кешен | Ацетилдену/белсенділік өзгерісі; NDUFA9 әрекеттесуі | Әр нақты орын не механикалық түйісуді бекітпейді |
| ATP-синтаза | OSCP Lys139; басқа жұмыста His135 арқылы pH-тәуелді байланысу | Нысана модификациясын SIRT3 босауынан ажырату |
| SOD2 | Әртүрлі жұмыста функционалдық Lys68/Lys122 | Әмбебап көбейткіш те, H₂O₂ жою да жоқ |
| CypD/FoxO3 | Өткізгіштікті реттеу және модельдердің стресс жауабы | Жасуша өлімін толық бөгеу не дәлелденген адам емі жоқ |
Бұл — ұсынылған қолжазбаның баяндау шолуы; 2026 жылғы 8 қазанда даулы сілтемелер, механизмдер және құрылымдық жазбалар мақсатты тексерілді. NCBI/PubMed бастапқы зерттеулерінің метадеректері мен аңдатпалары және RCSB PDB жазбалары пайдаланылды; нақты сұрақтар үшін стехиометрия, NAD⁺ тасымалы және адамдағы NR туралы қажетті жұмыстар қосылды. Іздеу жүйелі болған жоқ, ең жаңа әдебиетті толық қамту мәлімделмейді, формалды GRADE бағалауы мен сыртқы рецензия жүргізілмеді. Аңдатпалар кей механистік тұжырымның егжей-тегжейін тексеруді шектейді; дәлелденбеген нақты сандар мен клиникалық тағайындаулар көшірілмеді.
SIRT3 митохондриялық ақуыздарды сақтауға және отын өзгерісіне бейімделуге көмектеседі, бірақ оның қызметі орналасуына, қолжетімді NAD⁺-қа және нақты субстраттарға негізделеді. Биохимияны, орынға бағытталған модификацияны және генетикалық модельді біріктіру әсіресе сенімді. Емге көшу үшін адамда нысанаға әсер ету, клиникалық нәтижелер және жағымсыз әсер өлшемдері қажет; NAD⁺ көбейту немесе бір зертханалық маркерді өзгерту жеткіліксіз.
answer
answer
answer
answer