
Қартаюдағы NAD⁺: компартменттер, CD38, PARP1, SARM1 және араласу шектері
Жасуша компартменттеріндегі NAD⁺ синтезі мен жұмсалуы, CD38/PARP1/SARM1 құрылымы мен кинетикасы және адамдағы NR/NMN зерттеулерін сыни талдау.
Жасуша компартменттеріндегі NAD⁺ синтезі мен жұмсалуы, CD38/PARP1/SARM1 құрылымы мен кинетикасы және адамдағы NR/NMN зерттеулерін сыни талдау.
NAD⁺ деңгейі бір мезгілде екі ағынға тәуелді: B3 витамині мен триптофанның өңделу өнімдерінен кофактор түзілуіне және оның сигналдық реакцияларда жұмсалуына. Биоптаттағы концентрация — осы теңгерімнің белгілі сәттегі көрінісі, «қартаю жылдамдығының» тікелей өлшемі емес. CD38, PARP1 және SARM1 NAD⁺-ты әртүрлі компартментте, әртүрлі себеппен тұтынады; оларды бір зиянды «ағызу арнасына» біріктіруге болмайды, өйткені PARP-тәуелді ДНҚ жөндеуі мен кальций сигналдары жасушаға қажет. Мұнда катализ, топология және жануар тәжірибесін клиникаға көшіру шектері қарастырылады.
NAD⁺-тың тотыққан пиридин сақинасы дегидрогеназа реакцияларында субстраттан гидрид қабылдайды: RH₂ + NAD⁺ ⇄ R + NADH + H⁺. NADH қайта тотыққанда NAD⁺ қалпына келеді; мұндай цикл динуклеотидтің жалпы пулын міндетті түрде азайтпайды. Цитозольдік глицеральдегид-3-фосфатдегидрогеназа, митохондриялық пируват және α-кетоглутаратдегидрогеназа кешендері, IDH3 пен MDH2 әртүрлі субстратты ортақ NAD⁺/NADH жұбымен байланыстырады. I кешен NADH электрондарын қабылдап, FMN мен Fe–S орталықтары арқылы убихинонға жеткізеді; ұштасқан конформация өзгерістері протон градиентін жасайды. NADH тек NDUFV1-ді тікелей тотықсыздандырады немесе әр айналым барлық жағдайда миллисекундқа созылады деуге болмайды.
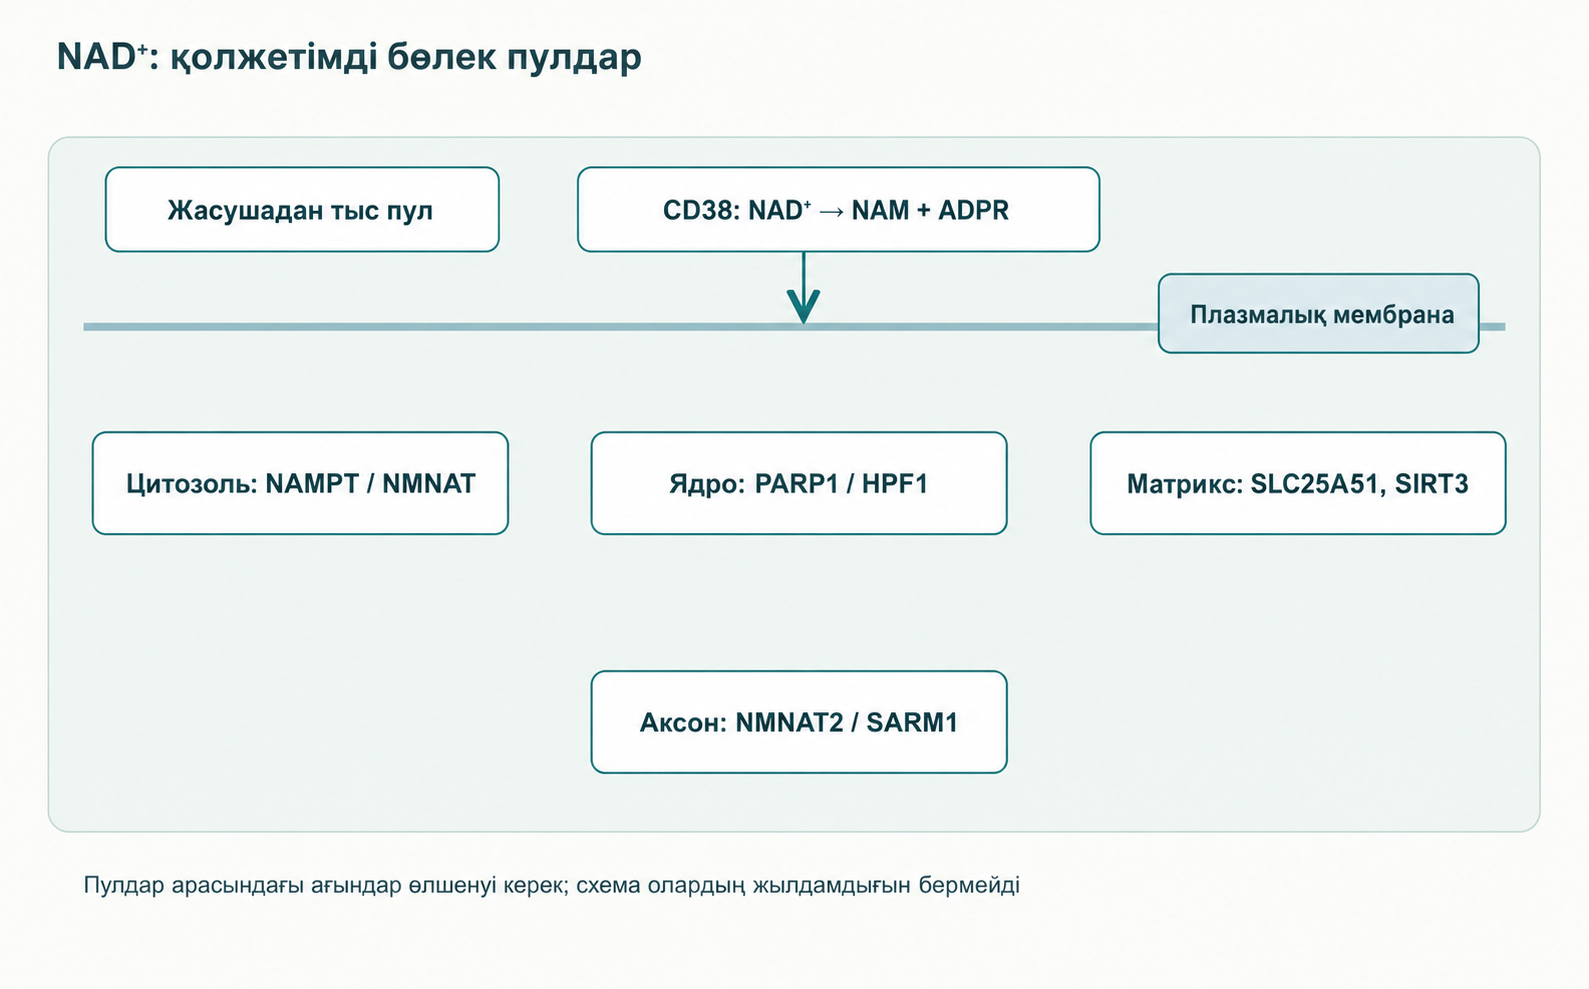
Басқа реакциялар NAD⁺-тың N-гликозидтік байланысын үзіп, никотинамидті, NAM, босатады. CD38 гидролаза режимінде ADP-рибоза түзеді; PARP ADP-рибозил қалдығын акцепторға тасымалдап, тізбек құра алады; сиртуиндер ақуызды деацилдеу үшін NAD⁺ пайдаланып, O-ацил-ADPR түзеді. Олардың бәрін NAD⁺ + H₂O → NAM + ADPR түрінде жазу химиялық тұрғыдан дәл емес. Жұмсалған молекула тиісті жолдармен қайта синтезделуі керек, бірақ ДНҚ жөндеу кезіндегі жұмсалу өздігінен ауру емес. Никотинамид кейбір NAD⁺-тәуелді ферменттерді тежей алады; жасуша ішіндегі мөлшері оның түзілуі, қайта пайдаланылуы және шығарылуына тәуелді.
Экстракцияланған NAD(H)-тың жалпы концентрациясын, бос NAD⁺/NADH арақатынасын және әдістің кеңістіктік, уақыттық ажыратуын бөлу қажет. Цитозольдегі бос арақатынас әдетте матрикстен әлдеқайда жоғары: лактатдегидрогеназа және басқа тепе-теңдіктер тотыққан ортаны қолдайды, ал матрикс субстрат тотығуынан тотықсыздандыру эквиваленттерін алады. 700:1 және 8:1 сияқты сандар нақты жүйені бейнелейді, барлық жасуша мен жасқа арналған норма емес. Нернст потенциалы белсенділіктер арақатынасына, pH пен температураға тәуелді; стандартты E°′ матрикстің нақты потенциалын алмастырмайды. Тотыққан түр жетіспесе GAPDH баяулауы мүмкін, бірақ гликолиз бағыты глицеральдегид-3-фосфат, 1,3-бисфосфоглицерат, фосфат және ұштасқан реакцияларға да байланысты. Жалпы NAD⁺-тың бір өлшемінен метилглиоксаль жиналуын автоматты түрде шығаруға болмайды.
Ішкі митохондриялық мембрана NAD(H)-тың еркін диффузиясын шектейді, алайда SLC25A51 NAD⁺-ты матрикске тасымалдайды; үлесі тін мен жағдайға байланысты. Цитозольдегі NADH өзі өтпей, малат–аспартат тасымалдау циклі арқылы тотықсыздандыру эквиваленттерін береді. MDH1 NADH есебінен оксалоацетатты малатқа айналдырады; SLC25A11 малатты α-кетоглутаратқа алмастырады; матрикстегі MDH2 малатты тотықтырып NADH түзеді; GOT2, цитозольдік GOT1 және аспартат/глутамат тасымалдағыштары көміртек–азот циклін тұйықтайды. Глицерол-3-фосфат циклі электрондарды тыныс тізбегіне жеткізудің балама жолы. Ядро мен цитозоль ұсақ метаболиттерді поралар арқылы алмастыра алады, бірақ жергілікті NMNAT1 мен тұтынушылар функционалдық әркелкілік туғызады. Мелатониннің митохондриялық жолдары органелланы жалпы «қорғаныс» санымен сипаттамай, матрикс пен мембрананы ажырату керектігін көрсетеді.
De novo жолы L-триптофаннан N-формилкинуренин, кинуренин, 3-гидроксикинуренин, 3-гидроксиантранилат және 2-амино-3-карбоксимуконат жартылай альдегиді, ACMS, арқылы хинолинатқа жетеді; TDO/IDO, AFMID, KMO, KYNU және HAAO қатысады. ACMSD ACMS-ті хинолинатқа өздігінен циклденуден басқа бағытқа бұрады; QPRT хинолинат + PRPP → NaMN + PPᵢ реакциясын жүргізеді. NMNAT NaMN + ATP → NaAD + PPᵢ түрінде аденилдейді; глутаминге тәуелді NADSYN1 NaAD + глутамин + ATP + H₂O → NAD⁺ + глутамат + AMP + PPᵢ реакциясын жүргізеді. Қабыну IDO1-ді күшейтіп, триптофан мен кинуренин метаболиттерінің таралуын өзгерте алады, бірақ бұл барлық адамда «QPRT бөгелуін» және нейроуытты хинолинат жиналуын білдірмейді. «1 мг ниацин эквивалентіне 60 мг триптофан» — белгілі жағдайда қолданылатын тағамдық масса коэффициенті, бір NAD⁺ үшін 60 триптофан молекуласы деген стехиометрия емес.
Preiss–Handler никотин қышқылынан басталады: NA + PRPP —NAPRT→ NaMN + PPᵢ; кейінгі NMNAT және NADSYN1 de novo жолымен ортақ. Қайта пайдалану жолында NAM + PRPP —NAMPT→ NMN + PPᵢ; NMN + ATP —NMNAT→ NAD⁺ + PPᵢ. NAMPT PRPP, ATP және транскрипция реттелуіне тәуелді; «шектеуші кезең» ұғымы режим мен тінге қарай өзгереді. NR NRK1/2 арқылы кіреді: NR + ATP → NMN + ADP. Тағамдық прекурсорлардың елеулі бөлігі жасушалық NAD⁺ түзілгенше ішек пен қанда өзгереді; капсула құрамы «NMN әр жасушаға тікелей жеткізіледі» дегенді дәлелдемейді. NMNAT1 көбіне ядролық, NMNAT2 цитозольдік/везикулалық және аксон үшін маңызды; NMNAT3 таралуы мен матрикстегі рөлі түрлер мен тіндерде өзгеше. SLC25A51 арқылы да NAD⁺ матрикске түсе алады. Қайта пайдалану үлесінің бір пайызы барлық тіннің тәуліктік айналымына әмбебап емес. NAMPT пен CLOCK:BMAL1/SIRT1 байланысы тәжірибеде көрсетілгенімен, адамға прекурсор қабылдаудың ең жақсы сағатын белгілемейді. B3 түрлері мен доза әсерлері ниацин және липид алмасуы туралы мақалада бөлек талданады.
Бауыр, бұлшықет, май, ми және бүйректегі NAD⁺-тың жаспен төмендеуі жөніндегі деректер әркелкі; адамда барлық мүшені біріктіретін тұрақты пайыздар қатары жоқ. Жасушалық құрам, үлгі алу уақыты, мұздату, экстракция және NAD⁺, NADH не қосындысы өлшенуі концентрацияға әсер етеді; бір тіннің жасушалары әртүрлі пулға ие. Адам миының ³¹P-MRS әдісі in vivo тіндік сигналдарды бағалайды, бірақ кеңістіктік ажыратуы мен спектр бөлінуі шектеулі; нейрон цитозолі мен микроглияны бөлек анықтамайды. Тері биоптатында да жасуша мен жасушааралық орта үлестері өзгеріп тұрады. Жаспен байланыс NAD⁺ төмендеуі саркопения, стеатоз немесе когнитивтік әлсіреудің бастапқы себебі екенін дәлелдемейді: ауру, қабыну мен құрам өзгерісі өлшемді өзгерте алады. Салыстыру үшін әдістердің үйлесімділігі мен жасушалық құрамды бақылау қажет.
Gomes және әріптестері тышқанда NAD⁺ азаюын SIRT1 арқылы HIF-1α бақылауының әлсіреуімен, c-MYC/TFAM өзгеруімен және ядролық/митохондриялық тыныс ақуыздары экспрессиясының теңгерімсіздігімен байланыстырды. Қалыпты оттекте HIF-1α белсенділігі «псевдогипоксия» деп аталды, бірақ қартаятын әр адамда тыныстың міндетті күйреуі көрсетілген жоқ. HIF-1α тек деацетилдеумен реттелмейді: пролилгидроксилазалар O₂, Fe²⁺ және 2-оксоглутарат қолданады; pVHL гидроксилденген ақуызды танып, ыдырауға жібереді. Деацетилдеу транскрипциялық белсенділікті өзгерте алады, бірақ ақуыз жиналуы мен промоторға әсер ету — бөлек деңгейлер. TFAM митохондриялық ДНҚ-ны орап, транскрипциялайды; ол 13 тыныс полипептидін кодтайды, алайда «барлық 13 транскрипциясы тоқтайды» деу артық. II кешен толық ядролық болғандықтан, теңгерімсіздік бүкіл OXPHOS жоғалуынсыз болуы мүмкін. Клиникалық тұжырым үшін бір адам тінінде компартменттік пулдар, HIF-1α, транскрипттер мен тыныс өлшенуі керек; тышқандағы механизмнің бағыты жеткіліксіз.
CD38-дің әдеттегі түрі — II типті мембраналық ақуыз: қысқа N-ұшы цитозольге қарайды, бір трансмембраналық спираль үлкен гликозилденген катализдік доменді жасуша сыртында ұстайды. Эктодомен кристалл құрылымында ADP-рибозилциклаза тұқымдасының қатпары, дисульфид көпірлері және NAD⁺-ты никотинамид–рибоза байланысын үзуге орналастыратын қалта көрінеді. Glu226 катализ үшін шешуші; жанындағы Glu146, Trp189 және басқа қалдықтар байланысу мен өнім таңдауға әсер етеді. Белсенді қалдық мутациясы мен құрылым механизмді талдауға мүмкіндік береді, бірақ тұрақты ковалентті «Glu226–рибоза» аралық қосылысы не әр қалдықтың міндетті рөлі туралы тұжырым тікелей құрылымдық-кинетикалық дерек талап етеді. Су қолжетімділігі, pH және никотин фрагментінің орны гидролиз/циклдену тармақтарын өзгертеді. Толық ақуыз беткі маркер әрі жасушалық байланыс қатысушысы; CD38 нокауты фенотипін тек NADase реакциясына жатқызуға болмайды.
Гидролазалық реакция: NAD⁺ + H₂O —CD38→ NAM + ADPR; балама молекулаішілік шабуыл NAD⁺ —CD38→ NAM + циклдік ADPR, cADPR, береді. Адам CD38-інде кейбір in vitro жағдайда гидролиз басым, бірақ өнім арақатынасы субстрат, pH және өлшеу жүйесіне тәуелді. «Барлық тінде дәл 99%» немесе «бір cADPR үшін әрқашан жүз NAD⁺ жоғалады» — дұрыс емес. CD38 негіз алмасуын да катализдейді: NADP⁺ + никотин қышқылы → NAADP + NAM, әсіресе қышқыл ортада. cADPR жасушаішілік қорлардан Ca²⁺ босауын реттеумен байланысты; NAADP екі саңылаулы TPC арналары мен қосымша ақуыздар қатысатын лизосомалық-эндосомалық жүйелер арқылы кальций жауабын іске қосады. Делдалдарды ескермей NAADP-ты «тікелей TPC агонисі» деу тым қарапайым. Өнімдер қалдық емес: тиісті концентрацияда сигнал қызметін атқарады, ал ферментті толық тежеу иммундық функцияны өзгертуі мүмкін.
CD157, BST1, осы тұқымдасқа жатады, бірақ сыртқы мембранада II типті спиральмен емес, гликозилфосфатидилинозитол якорімен бекінеді. Катализдік қасиеті мен жасушалық өзара әрекеті CD38-ден өзгеше; BST1 экспрессиясы жасушаішілік NAD⁺ жоғалуына тура пропорционал емес. Ол кейбір иммундық және стромалық популяцияда кездесіп, байланыс, миграция және жергілікті кальций сигналдарына қатысуы мүмкін. Әртүрлі жағдайға бір kcat тағайындау немесе Панет жасушасындағы CD157-ден Lgr5⁺ криптасы қалпына келуіне дейінгі тізбекті жасқа байланысты NAD⁺ сарқылуының дәлелденген себебі деу тікелей тәжірибесіз орынсыз. Функционалдық тәжірибе катализдік және адгезиялық рөлдерді бөлуге тиіс.
CD38 молекулаларының көбінде домен сыртқа бағытталған, ал өлшенетін NAD⁺ негізінен жасуша ішінде. Сондықтан «беткі CD38 барлық ядролық NAD⁺-ты жұтты» деген сызба топологияға қайшы. Ықтимал байланыстар: CD38 сыртқы NAD⁺ пен NMN-ді ADPR не рибозо-5-фосфат пен NAM-ға өңдейді; жасуша реттелетін арналар арқылы немесе зақымданғанда NAD⁺ бөледі; кейбір жүйеде домені ішке қарайтын кері CD38 бағыты сипатталған; ішкі мембраналарда субстратқа қолжетімділігі басқа CD38 болуы мүмкін. Әр механизм ақуыз орны, мембрана бүтіндігі мен субстрат ағыны туралы дәлел талап етеді. Кері бағыттың тұрақты пайызы, Cx43/Panx1 арқылы үздіксіз бөлу немесе эндоцитоздалған CD38-дің нуклеоплазмаға жеткізілуі бөлек өлшенуі керек. NR мен NMN-ді CD38 бірдей ыдырататын прекурсор деуге болмайды: субстрат ерекшелігі қажет. Сыртқы концентрациялар жергілікті әрі жылдам өзгереді; бір цитозольдік санмен салыстыру тіндік ағынды есептемейді.
Camacho-Pereira әріптестерімен жүргізген тышқан тәжірибесінде Cd38 генінің болмауы қартаюда NAD⁺ сақталуымен және митохондриялық көрсеткіш өзгеруімен қатар жүрді. Chini мен Covarrubias кейін CD38 белсенділігінің артуын миелоидты жасушалармен және сенесцентті жасушалардың секреторлық ортасымен байланыстырды. Кейбір тінде CD38⁺ макрофагтар маңызды тұтынушыға айналады, бірақ бүкіл CD38 тек макрофагта немесе әр жасуша «M1» деген сөз емес. SASP әркелкі; стимул мен тінге қарай IL-6, IL-1β және басқа молекулаларды қамтиды; IFN-γ-ны әр сенесцентті жасушаға телуге болмайды. Қабынулық транскрипция желілері CD38-ді арттыра алады, бірақ CpG деметилденуі көп есе өсудің әмбебап міндетті себебі екені дәлелденбеген. Нокаут иммундық дамуды да өзгертеді, сондықтан катализдік тұтыну үлесін бөлу қажет. Апигенин мен CD38 талдауында биохимиялық тежеу мен адамдағы әсер ажыратылған.
Ядролық PARP1 үш N-ұштық мырыш байланыстыру модулін, ядролық орналасу және BRCT-доменді автоматты модификация аймақтарын, WGR мен C-ұштық катализ доменін біріктіреді. Zn1/Zn2 ДНҚ үзілу құрылымын таниды; WGR ДНҚ байланысын катализге жеткізеді, ал спиральды HD субдомені активацияға дейін субстрат кіруін шектейді. Катализ NAD⁺-тан ADP-рибозаны тасымалдап NAM босатады. Бұл зақымнан кейін ядролық жергілікті тұтынудың күрт өсуін түсіндіреді. PARP2-де тану құрылысы басқа әрі ол жөндеуге қатысады; PARP1 белсенділік үлесі стресс пен жасушалық тестке тәуелді, тұрақты 90% емес.
Үзілуге байланысу Zn, WGR мен HD-ны жақындастырып, белсенді орталық тежелуін әлсіретеді. HPF1 PARP1/2 катализдік бетін толықтырып, гистон мен басқа ақуыз сериндерінің ADP-рибозилденуіне көмектеседі; HPF1 Glu284 осы ерекшелік үшін маңызды. Бастау: ақуыз–Ser–OH + NAD⁺ → ақуыз–Ser–ADPR + NAM; ұзару: ақуыз–ADPRₙ + NAD⁺ → ақуыз–ADPRₙ₊₁ + NAM. Кейбір тізбек тармақталады, ұзындығы мен үлесі фермент пен режимге байланысты. PARG полимердің рибоза–рибоза байланыстарын үзеді, ал сериндегі соңғы ADP-рибозаны ARH3 алып тастайды. «PARG барлық ізді өшіреді» — дәл емес. PAR зақым жауабы ақуыздарын жинап, хроматин байланыстарын өзгертеді; қызметі ДНҚ-ны электрлік тебумен шектелмейді. XRCC1, POLβ және LIG3 тиісті жағдайда біртізбекті үзілу мен негізді алып тастау арқылы жөндеуге қатысады.
8-oxo-dG, негізсіз орындар, біртізбекті үзілістер және бұзылған теломерлер жауаптың әртүрлі түйінін іске қосады. Тотыққан негіз PARP1 оны тікелей таниды дегенді білдірмейді: негіздік эксцизиялық жөндеу алдымен оны өңдеп, аралық үзіліс жасайды. Теломер ошақтары да бос ДНҚ ұштары ағынына тең емес. Күшті геноуытты әсерде PARP1 NAD⁺-ты жылдам жұмсай алады; PARG полимерді мономер өнімдерге қайтарады, бірақ NAD⁺-ты автоматты қалпына келтірмейді. Сарқылу зақым мөлшері, NAMPT/NMNAT, ATP және уақытқа тәуелді. «Қалыпты қартаюда бірнеше сағатта 80–90%» деген әмбебап сан жедел модельді көшіреді. Артық белсенділік дәлелденбегенде PARP1-ді тежеу қауіпті, себебі геномды сақтауға қажет.
PARP1 шамадан тыс белсенуі бос PAR тізбектері мен елеулі NAD⁺ шығынын энергия бұзылуымен біріктіруі мүмкін. Сипатталған тәжірибелік тармақта PAR митохондриялық AIF босауына көмектеседі; AIF MIF-пен байланысады, оның нуклеаза белсенділігі хроматиннің ірі фрагменттерге бөлінуіне қатысады. Бұл классикалық каспазалық апоптоздан өзгеше партанатос деп аталады. AIF босауға дейін ішкі митохондриялық мембранамен байланысты, тек сыртқы мембранада емес. Кальпаин, MIF үлесі мен фрагмент көлемі модельге тәуелді; ауыр зақым өзге өлім жолдарын қатар іске қоса алады. Төмен NAD⁺ партанатос диагнозы емес: PAR тәуелділігі, AIF қозғалысы, MIF және баламаларды жоққа шығару қажет. NMNAT сатысында NAD⁺ ресинтезі ATP жұмсайды, бірақ әр цикл бүкіл ATP-ты автоматты, қайтымсыз «жағып» жібермейді. Ісікке қарсы PARP тежегіштері ДНҚ үстінде PARP-ты ұстап қалу мен гомологтық жөндеу ақауындағы синтетикалық летальдылықты қамтиды; тек NAD⁺ сақтау емес.
SARM1 құрамында N-ұштық реттеуші ARM, жұп олигомеризация SAM домендері және NADase-белсенді C-ұштық TIR бар. Құрылым сақина тәрізді октамерді көрсетеді; бастапқы доменаралық байланыстар TIR аймақтарының өнімді әрекеттесуін тежейді. Бір «жабық» кристалл құрылымы тірі аксонның барлық күйін сипаттамайды: нуклеотид, серіктес ақуыз бен зақым конформацияны өзгертеді. SARM1 катализі аксотомиядан кейінгі жергілікті дегенерация үшін маңызды, бауыр не қандағы барлық жасқа байланысты NAD⁺ төмендеуіне түсінік емес.
Қысқа өмірлі NMNAT2 аксонға жеткізіліп, NMN + ATP → NAD⁺ + PPᵢ реакциясын жүргізеді. Жеткізу тоқтауы мен зақымнан кейінгі ыдырау жергілікті NMN/NAD⁺-ты өзгертеді. NMN мен NAD⁺-тың ARM қалтасына бәсекелесе байланысуы SARM1 өзін-өзі тежеуіне әсер етеді; NMN өсуі мен NAD⁺ төмендеуі активацияны ықтимал етеді. NMNAT2 убиквитинденуі мен тасымалын бірнеше реттеуші басқарады, сондықтан міндетті жалғыз Phr1/Highwire тізбегін не тұрақты жартылай өмірді әр аксонға көшіруге болмайды. Сызба жергілікті арақатынастың уақыттық өлшемімен толықтырылуы керек, бір культура шегін барлық адам жүйкесіне телуге болмайды.
Белсенді SARM1 TIR NAD⁺-ты NAM мен ADPR түзіп жұмсайды; циклдік өнімдер де мүмкін. Энергия тапшылығы мен метаболиттер кальций сигналдарын өзгерте алады; белсенген кальпаиндер спектрин, нейрофиламент пен басқа цитоскелет ақуыздарын бөледі. SARM1 блокадасы кесілген аксонның дисталдық бөлігінің морфологиясын ұзағырақ сақтайды, бірақ өткізгіштікті қалпына келтіру, нейрон денесінің регенерациясы немесе БАС, Альцгеймер ауруы мен глаукоманы әмбебап емдеу дәлелі емес. Бір аксотомиядағы сарқылу жылдамдығы барлық нейропатияда «20–40 минутта нөл» деген ортақ сан емес. Валлерлік дегенерация — көпсатылы жергілікті зақым нәтижесі; SARM1 маңызды, бірақ контекстке тәуелді себептік ось.
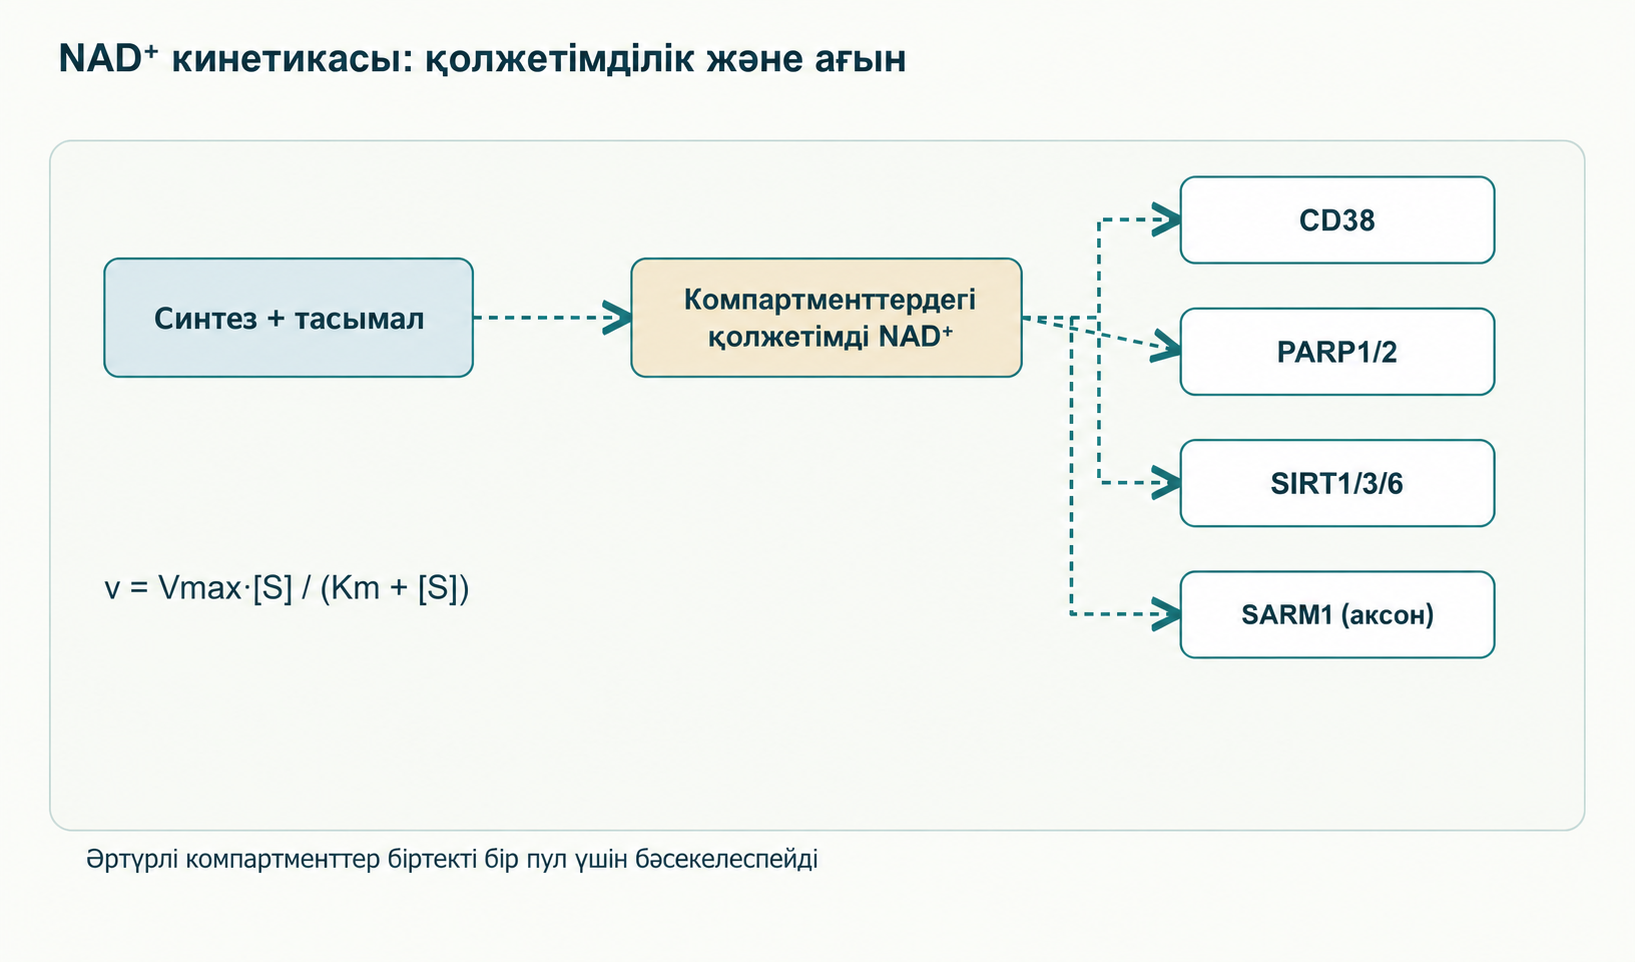
Оқшауланған фермент пен жеңілдетілген реакция үшін v = Vmax·[S]/(Km + [S]) жылдамдықтың қолжетімді субстратқа тәуелділігін сипаттайды. Km — белгіленген жағдайда Vmax жартысына сәйкес концентрация; күрделі механизм мен ұштасқан реакцияларда ол тепе-теңдік байланысу тұрақтысы Kd-ға тең емес. Сыртқы CD38, ядролық PARP1, матрикстегі SIRT3 және аксондағы SARM1 Km мәндерін бір ыдыста отырғандай салыстыруға болмайды. Компартмент ішінде де жылдамдық белсенді фермент мөлшеріне, ақуыз субстратына, NAM тежегішіне, pH, посттрансляциялық өзгерістер мен бос NAD⁺ қолжетімділігіне тәуелді. SIRT6 үшін ацил тобы мен активаторлар ерекше маңызды; бір «SIRT6 Km» барлық реакцияны сипаттамайды. Әртүрлі жағдайда алынған дәл мәндер физиологиялық тұтынудың ортақ ретін бермейді.
Жергілікті NAD⁺ динамикасын тұжырымдамалық түрде d[NAD⁺]/dt = J_синтез + J_кіру − J_CD38 − J_PARP − J_SIRT − J_SARM1 − J_басқа деп жазып, NAD⁺⇄NADH редокс өзгерісі мен аймақтар арасындағы алмасуды қосуға болады. Әр ағын өлшенуі не негізделуі керек; жалғыз Km арақатынасы оның шамасын бермейді. 400 және 120 мкМ бос NAD⁺, еркін таңдалған 20 не 250 мкМ Km мысалы қисық пішінін көрсетеді, жас жасушаның кәріге өлшенген өтуі емес. Субстрат азайғанда Vmax өзгермесе кез келген фермент баяулайды; CD38 не PARP1 жалпы ағынды тек белсенді мөлшері немесе стимуляциясы өзгерсе арттыра алады. Олар сиртуиндерді автоматты «сөндірмейді»: сол қолжетімді пулдағы тұтыну қайта пайдаланумен өтелетін мөлшерден асатынын көрсету керек. Ядролық PARP1 мен матрикстегі SIRT3 тасымал және метаболизм арқылы байланысты, бір молекула үшін тікелей емес, жанама бәсеке.
SIRT1 арқылы PGC-1α, p53 пен RelA/p65 деацетилденуі, SIRT3-тәуелді SOD2/IDH2 өзгерістері және SIRT6-ның хроматинді ұстауы әртүрлі модельде зерттелген. PGC-1α бірнеше фактор арқылы митохондрия биогенезін үйлестіреді, бірақ ацетилденуі GCN5, қоректік сигнал мен тін белсенділігіне де тәуелді; деацетилдеу жоғалуы органелла жаңаруы «толық тоқтады» деген сөз емес. SOD2-де нақты қалдық пен белсенділік, IDH2-де NADPH түзілуі маңызды; 80% белсенділік жоғалуын әмбебап етуге болмайды. p53 деацетилденуі стресс жауабын өзгертетіндіктен, SIRT1-ді еркін күшейту ДНҚ зақымында міндетті түрде пайдалы емес. RelA Lys310 ацетилденуінің транскрипцияға әсері әр цитокин NAD⁺ тапшылығынан екенін дәлелдемейді. SIRT6 H3K9/H3K56, LINE-1 басылуы және геном тұрақтылығымен байланысты; кейінгі cGAS–STING қатысуы нақты жасушада бөлек дәлелденуі керек. Жолдар әрекеттесе алады, бірақ бір биомаркер «NAD⁺ аз → барлық сиртуин сөнді → қартаюдың барлық белгісі» тізбегін бекітпейді.
Апигенин, кверцетин және лютеолин биохимиялық жүйеде CD38 NADase белсенділігін тежейді. Escande мен әріптестері апигениннің CD38-ді тежеуін және жасуша мен тышқандағы NAD⁺-тәуелді метаболизм өзгерісін көрсетті; IC₅₀ субстратқа, фермент конструкциясына және талдау жағдайына байланысты. Тазартылған қосылыстың микромолярлық әсері ішке қабылдағаннан кейін тіндегі қолжетімді бос концентрациямен бірдей емес. Глюкурондану, сульфаттану, ақуызға байланысу және метаболит таралуы көшіруді қиындатады. Әр флавоноид Glu226-мен тікелей жанасады деу сол молекуланың құрылымдық не мутациялық дәлелін талап етеді. Кверцетин мен лютеолиннің басқа нысаналары бар, ал кверцетиннің ықтимал сенолитикалық әсері жасуша мен комбинацияға тәуелді. Апигенин шолуы биохимия, GABA сигналдары және адам деректерін бөледі.
78c — зерттеуге арналған шағын молекулалы CD38 тежегіші. Tarragó мен әріптестерінде кәрі тышқанның тіндік NAD⁺-ын өсіріп, кейбір метаболизмдік және функционалдық көрсеткішті өзгертті. Наномолярлық IC₅₀ фермент талдауын сипаттайды, адам дозасы, тиімділігі немесе қауіпсіздігі емес. Селективтілік сол тәжірибеде CD157, басқа NAD⁺ тұтынушысы және тін концентрациясымен тексерілуі керек; «ешбір басқа нысанаға әсер етпейді» негізсіз. Адамда саркопенияны болдырмауды немесе митохондрияны қалпына келтіруді дәлелдейтін 78c клиникалық зерттеуі мұнда жоқ. Онкологиядағы CD38 антиденесі катализден бөлек иммундық және жасушалық салдар береді; тағамдық флавоноидқа тең емес.
Олапариб пен басқа PARP тежегіштері нақты онкологиялық көрсетілімде қолданылады; гомологтық рекомбинация ақауындағы әсері катализді тежеу мен молекулаға қарай әртүрлі деңгейде PARP-ты зақымдалған ДНҚ-да ұстап қалуды қамтиды. Бұл сау адамда NAD⁺ шығынын болжамды азайтудан өзге пайда–зиян теңгерімі. Миелосупрессия, басқа уытты әсерлер, дәрілік өзара әрекет пен ісік геномы онкологиялық емді қартаю профилактикасына көшіруді негізсіз етеді. Бірақ кері «PARP-ты кез келген қысқа төмендету мутацияны дереу көбейтеді» деу де деректен асады: нәтиже зақым, PARP1/2, доза және басқа жөндеу жолына тәуелді.
Никотинамид PARP реакциясының өнімі әрі in vitro NAD⁺ тұтынатын ферментті тежей алады, бірақ NAMPT арқылы қайта пайдалануға субстрат та болады. Бір IC₅₀-ден PARP-ты «жұмсақ реттеу» дозасын есептеу мүмкін емес: әр тін концентрациясында қарсы екі ағын өзгереді. Куркумин, ресвератрол мен өзге полифенолдар тотығу стрессі модельдерінде зерттелген; 8-oxo-dG төмендеуі адамда жөндеуді бұзбай патологиялық PARP гиперактивациясы басылғанын дәлелдемейді. Профилактика үшін ДНҚ зақымы/жөндеуі, фармакодинамика және клиникалық нәтиже тікелей өлшенуі керек. B₃ тағамдық түрлері мен никотинамидтің жоғары дозалық фармакологиясы ниацин мақаласында ажыратылған.
Кесте дизайнды, өлшенген пулды және қорытынды шегін бөледі: қандағы NAD⁺ өсуін қосымша өлшемсіз ядро, бұлшықет матриксі не аксондағы бос NAD⁺ концентрациясына айналдыруға болмайды.
| Бастапқы зерттеу | Популяция және араласу | Нәтиже | Анықталмағаны |
|---|---|---|---|
| Trammell және әріптестер, 2016 | Сау адамдардағы шағын фармакокинетикалық серия, бір реттік NR дозалары | NR-тәуелді метаболиттердің пайда болуы және өлшенген қан NAD⁺ метаболомының өсуі; NAM/NAAD жолы мен үлгі уақыты маңызды | Ұзақ пайда, тін қалпына келуі, ауру қаупінің азаюы |
| Martens және әріптестер, 2018 | Орта және егде жастағы адамдардағы рандомизацияланған айқаспалы NR зерттеуі, әр кезең алты апта | Қан NAD⁺ өсуі және зерттелген мерзімдегі көтерімділік | Қысымның топша сигналы ізденістік, гипертензия емі емес; клиникалық жасару мен тамыр оқиғасының азаюы дәлелденбеген |
| Yoshino және әріптестер, 2021 | Менопаузадан кейінгі артық салмақ/семіздік және предиабеті бар 25 әйел, NMN 250 мг/тәулік он апта | Гиперинсулинемиялық эугликемиялық клэмппен өлшенген қаңқа бұлшықеті инсулин сезімталдығының жақсаруы, бұлшықет сигналдарының өзгеруі | Ерлер мен басқа популяциядағы әсер, диабет профилактикасы және ұзақ қауіпсіздік |
| Pencina және әріптестер, 2023 | Артық салмақ/семіздігі бар 55–80 жастағы 32 адам, MIB-626 1000 мг күніне бір не екі рет немесе плацебо, 14 күн | Қан NMN/NAD метаболиттері өсуі, қысқамерзімді көтерімділік | Физикалық, когнитивтік және клиникалық тиімділік, ұзақ қауіпсіздік |
Метилденген NAM метаболиттері NNMT ағыны туралы ақпарат береді, бірақ пайда болуы SAM патологиялық сарқылуын не гипергомоцистеинемияны дәлелдемейді. Қан матрицасы, экстракция, LC–MS стандарттары және дозадан кейінгі уақыт әсер шамасын өзгертеді. Бастапқы витамин тапшылығы, семіздік пен тін зақымы — бөлек биологиялық жағдайлар. Yoshino-ның оң бұлшықет нәтижесімен қатар кейбір метаболизмдік соңғы нүктелер өзгермеген зерттеулер бар; қан NAD⁺-ының кез келген өсуін функция жақсаруы деуге болмайды. Кестедегі дозалар оқырманға тағайындау емес, зерттеу хаттамалары.
Механизмдік болжам түсінікті: егер CD38 қолжетімді прекурсор не NAD⁺ жұмсаса, катализін тежеу NR/NMN жауабын өзгертуі мүмкін. Бірақ тиісті тінде CD38 ағынын, белсенді тежегіш қолжетімділігін және монотерапиядан артық клиникалық пайдасын көрсету қажет. Сыртқы CD38 барлық жасушаішілік молекулаға еркін жете алмайды; NR мен NMN тасымалы және ферменттік тағдыры бөлек. «Кез келген NR/NMN-нің 70–85%-ы жасушаға жетпей бұзылады» немесе комбинация бос NAD⁺-ты барлық сиртуинге ортақ шектен міндетті асырады дегенді адам өлшемдері растамайды.
NNMT NAM + SAM → 1-метилникотинамид + S-аденозилгомоцистеин, SAH, реакциясын жүргізеді; SAH метаболизмі гомоцистеинмен байланысты. Бұл метил теңгерімінің ықтимал буыны, бірақ 1-метилникотинамид өсуінен NR/NMN міндетті клиникалық SAM сарқылуын туғызады деген қорытынды шықпайды. Бетаин–гомоцистеин метилтрансфераза негізінен бауыр мен бүйректе бетаинмен гомоцистеинді қайта метилдейді; әр прекурсорға TMG қосу дәлелденген стандарт емес және белгісіз қауіптен барлық тінді «сақтандырмайды». NR/NMN + апигенин + TMG үштігінің функциясы мен қауіпсіздігін растайтын зерттеулер мұнда жоқ. Ұйқы мен циркадтық ырғақ NAD⁺ метаболизмін өзгерте алады, бірақ мелатонин механизмдері бұл комбинацияның әмбебап кестесін де белгілемейді.
Модельде сенесцентті жасушалар SASP түзеді, оның сигналдары көршілес миелоидты жасушалардың CD38 мөлшерін арттыра алады. Белгілі сенесцентті жасушалар санын азайту не секреторлық фенотипін өзгерту жергілікті NAD⁺ тұтынуын өзгертуі ықтимал. Сенолитикалық әсер — таңдалған сенесцентті жасушалардың басым өлімі; сеноморфтық әсер — оларды міндетті жоймай SASP өзгерту. Екеуі де барлық CD38⁺ макрофагтың жүйелік жоғалуын немесе барлық тінде «M1-дің M2-ге» екілік ауысуын кепілдемейді.
Физетин доклиникалық модельде контекстік сенолитикалық және сеноморфтық белсенділік көрсетті, бірақ нақты культура/тышқан нысанасы мен дозасы адамға қауіпсіз «пульстік емді» дәлелдемейді. Дазатиниб пен кверцетин шағын ашық клиникалық жұмыстарда кейбір биомаркер мен көтерімділік бойынша зерттелген; жасқа байланысты NAD⁺ сарқылуын болдырмау, өмір сүруді жақсарту немесе ауру профилактикасы анықталмаған. Дазатиниб — маңызды қауіптері бар рецептілік ісікке қарсы дәрі. «Сенесцентті жасуша аз → тіндік CD38 аз → NAD⁺ көп → клиникалық пайда» тізбегін тиісті тін өлшемімен бір адам популяциясында сынау керек, бөлек тәжірибелерден жинамау қажет.
NAMPT пен NAD⁺-тәуелді процестер тәжірибелік тіндерде циркадтық сағатпен байланысты. Бұл әр адамның барлық мүшесінде тұрақты таңғы шың барын немесе NR/NMN-ді нақты сағатта ашқарынға қабылдау пайдалы екенін дәлелдемейді. Апигениннің әмбебап «түнгі CD38 блокадасы» мен ұсынылған дозаның дәлелденген ұйқы жақсаруына сәйкестігі де анықталмаған. Тәуліктік ырғақ, тағам, ауысымдық жұмыс, жас және тін фазаға әсер етеді; қабылдау уақытын функционалдық соңғы нүктемен клиникалық салыстыру бөлек міндет.
NAD⁺ прекурсорлары, полифенолдар, TMG, сенолитиктер мен сиртуин активаторларын біріктіру — өзара әсерлесетін бірнеше болжам, бір расталған хаттама емес. Жануар дозасын адамға автоматты көшіру немесе ресвератролды барлық SIRT1 субстратының әмбебап тікелей активаторы деу орынсыз: нәтиже нақты тестке, соның ішінде флуорофорлы субстратқа тәуелді. Әр зат пен комбинация қауіпсіздігі өзінің реттеуші және клиникалық контекстінде бағаланады.
Механизмді зерттеу үшін NAD⁺/NADH матрицасы мен әдісі, тазалық бақылауы бар фракциялау, үлгі уақыты, NR/NMN/NAM/NAAD/1-MNA алдын ала анықталуы керек; метил сарқылуы болжамында SAM/SAH/гомоцистеин тағам мен бүйрек функциясын ескере өлшенеді. Жалпы қабыну белгілері hs-CRP, IL-6, бауыр/бүйрек функциясы және клиникалық нәтижелер басқа сұраққа жауап береді, CD38 немесе PARP-тың арнайы тесті емес. Мононуклеардағы NAD⁺ өсім пайызы, «мінсіз» гомоцистеин не бірыңғай hs-CRP шегін стандарт әдіс және нәтижеге бағытталған зерттеусіз сау адамға емдік мақсат етуге болмайды. Зертханалық ауытқу TMG-ді өздігінен көбейту алгоритмімен емес, клиникалық жағдаймен түсіндіріледі.
NAD⁺ редокс химиясын ADP-рибоза тасымалы және деацетилдеумен байланыстырады. Әр көз бен тұтынушының үлесі тін, жасуша күйі және компартментке қарай өзгереді. CD38 қартаюдың иммундық контекстінде маңызды тәжірибелік рөл атқарады; PARP1 геномды қорғайды, бірақ ауыр зақымда үлкен ядролық пулды жұмсай алады; SARM1 зақымдалған аксонда жергілікті бағдарлама бастайды. Бұлар барлық мүшенің қартаюына ортақ жалғыз міндетті себеп емес. Қолжетімді субстрат пен қарсы ағындар өлшенбей Km арақатынасы NAD⁺ үшін ортақ басымдық бермейді.
Адамның NR/NMN зерттеулері ең сенімді түрде зерттелген доза мен мерзімде қолжетімді қан метаболиттері өзгергенін көрсетеді; жеке функционалдық сигнал популяция мен дизайнмен шектеледі. Қандағы NAD⁺ өсуі де, тышқан CD38/SARM1 жолына сәтті араласу да адам қартаюын баяулатуды дәлелдемейді. Келесі қадам — бір зерттеуде анатомиялық механизмді, тіндік NAD⁺ ағынын, алдын ала таңдалған функция нәтижесін және қауіпсіздікті байланыстыру. Бұған дейін комбинациялық схемалар клиникалық ұсыныс емес, болжам болып қалады.
Редакциялық негіз — 37 библиографиялық жазбасы бар берілген қолжазба. Механизм түйіндеріне CD38, PARP1–HPF1, SARM1 бойынша арнайы таңдалған бастапқы жұмыстар мен NR/NMN клиникалық хаттамалары қолданылды; шолулар компартментті түсінуге көмектеседі, бірақ бастапқы дәлелді алмастырмайды. Бұл сыни баяндау шолуы, жүйелі іздеу, GRADE бағалауы немесе сыртқы рецензия емес. Барлық доза мен тіркелген сынақ толық салыстырылған жоқ.
2026 жылғы 4 қазанда сақталған нысаналы тексеру Pencina сілтемесіндегі маңызды қатені анықтады: сипатталған метаболом жұмысы — 2023 жылы The Journals of Gerontology: Series A журналында жарияланған, MIB-626 1000 мг күніне бір не екі рет қолданылған 14 күндік тәжірибе. Ол бөлек физиологиялық жарияланыммен алмастырылмады. Yoshino гиперинсулинемиялық эугликемиялық клэмп қолданды, «гипергликемиялық эугликемиялық» емес. Тышқан моделі мен қысқамерзімді адам биомаркері біріктірілген геропротекцияны растамайды. Бұл жалғастыру сақталған ғылыми талдауды аударып, сақтады; жаңа жүйелі іздеу не сыртқы рецензия жүргізілген жоқ.
Жоқ. Қан жасушасы, ядро, митохондрия матриксі мен аксонның қолжетімді пулдары әртүрлі; тікелей тін әдісі және функционалдық нәтиже қажет.
Комбинацияның клиникалық әсері мен қауіпсіздігі анықталмаған. CD38 және NNMT жолдарының әрекеттесуі механизмдік болжам болып қалады.
PARP ДНҚ жөндеуіне қатысады; онкологиялық тежегіштің ерекше механизмі мен қаупі бар, сау популяциядағы профилактикалық пайда дәлелденбеген.