
Qarishda NAD⁺: kompartmentlar, CD38, PARP1, SARM1 va aralashuv chegaralari
Hujayra kompartmentlarida NAD⁺ sintezi va sarfi, CD38/PARP1/SARM1 tuzilishi va kinetikasi hamda insondagi NR va NMN tadqiqotlarining tanqidiy tahlili.
Hujayra kompartmentlarida NAD⁺ sintezi va sarfi, CD38/PARP1/SARM1 tuzilishi va kinetikasi hamda insondagi NR va NMN tadqiqotlarining tanqidiy tahlili.
NAD⁺ miqdorini bir vaqtda ikki oqim belgilaydi: B3 vitamini va triptofan qayta ishlanishi mahsulotlaridan kofaktor hosil bo‘lishi hamda uning signal reaksiyalarida sarflanishi. Biopsiyadagi konsentratsiya shu muvozanatning bir lahzadagi ko‘rinishi, «qarish tezligi»ning bevosita o‘lchovi emas. CD38, PARP1 va SARM1 NAD⁺ ni turli kompartmentlarda, turli sabablar bilan iste’mol qiladi; ularni yagona zararli «oqib ketish» deb birlashtirish mumkin emas, chunki PARP-ga bog‘liq DNK ta’mirlanishi va kalsiy signallari ham hujayra uchun zarur. Quyida katalitik reaksiyalar, topologiya va hayvon tajribalarini klinikaga ko‘chirish chegaralari ko‘rib chiqiladi.
NAD⁺ ning oksidlangan piridin halqasi degidrogenaza reaksiyalarida substratdan gidrid qabul qiladi: RH₂ + NAD⁺ ⇄ R + NADH + H⁺. NADH qayta oksidlanganda NAD⁺ tiklanadi; bu sikl dinukleotid umumiy zaxirasini albatta kamaytirmaydi. Sitozoldagi glitseraldegid-3-fosfat degidrogenaza, mitoxondriyadagi piruvat va α-ketoglutarat degidrogenaza komplekslari, IDH3 hamda MDH2 turli substratlarni umumiy NAD⁺/NADH juftligi bilan bog‘laydi. I kompleks NADH elektronlarini qabul qilib, FMN va Fe–S markazlari orqali ubixinonga uzatadi; bog‘langan konformatsiya o‘zgarishlari proton gradientini yaratadi. NADH faqat NDUFV1 ni bevosita qaytaradi yoki har aylanish har qanday sharoitda millisekund davom etadi deb bo‘lmaydi.
Boshqa reaksiyalar NAD⁺ ning N-glikozid bog‘ini uzib, nikotinamid, NAM, chiqaradi. CD38 gidrolaza holatida ADP-riboza hosil qiladi; PARP ADP-ribozil qoldig‘ini akseptorga ko‘chirib, zanjir tuzishi mumkin; sirtuinlar oqsilni deatsillashda NAD⁺ dan foydalanib O-atsil-ADPR hosil qiladi. Hammasini NAD⁺ + H₂O → NAM + ADPR deb yozish kimyoviy jihatdan noto‘g‘ri. Sarflanish tegishli yo‘llar orqali qayta sintezni talab qiladi, ammo DNK ta’mirida sarflanishning o‘zi kasallik emas. Nikotinamid ayrim NAD⁺-ga bog‘liq fermentlarni to‘sishi mumkin; hujayra ichidagi miqdori hosil bo‘lish, qayta foydalanish va chiqarilishga bog‘liq.
Ekstraksiya qilingan jami NAD(H), erkin NAD⁺/NADH nisbati va usulning fazoviy hamda vaqt bo‘yicha ajratishini farqlash kerak. Sitozoldagi erkin nisbat odatda matriksdagidan ancha yuqori: laktat degidrogenaza va boshqa muvozanatlar oksidlangan sitozol muhitini saqlaydi, matriks esa substrat oksidlanishidan qaytaruvchi ekvivalentlar oladi. 700:1 va 8:1 kabi sonlar muayyan tizim misoli, barcha hujayra va yosh uchun me’yor emas. Nernst potensiali faolliklar nisbati, pH va haroratga bog‘liq; standart E°′ matriksning haqiqiy potensialini almashtirmaydi. Oksidlangan shakl yetishmasa GAPDH sekinlashishi mumkin, ammo glikoliz yo‘nalishi glitseraldegid-3-fosfat, 1,3-bisfosfogliserat, fosfat va bog‘langan reaksiyalarga ham bog‘liq. Jami NAD⁺ ning bitta o‘lchovidan metilglioksal to‘planishini avtomatik xulosa qilish mumkin emas.
Ichki mitoxondriya membranasi NAD(H) erkin diffuziyasini cheklaydi, biroq SLC25A51 NAD⁺ ni matriksga tashiydi; hissasi to‘qima va sharoitga bog‘liq. Sitozol NADH o‘zi o‘tmasdan malat–aspartat tashish sikli bilan qaytaruvchi ekvivalentlarni beradi. MDH1 NADH hisobiga oksaloatsetatni malatga aylantiradi; SLC25A11 malatni α-ketoglutarat bilan almashadi; matriksdagi MDH2 malatni oksidlab NADH hosil qiladi; GOT2, sitozoldagi GOT1 va aspartat/glutamat tashuvchilari uglerod–azot siklini yopadi. Glitserol-3-fosfat sikli elektronlarni nafas zanjiriga uzatishning muqobil yo‘li. Yadro va sitozol kichik metabolitlarni poralar orqali almashishi mumkin, ammo mahalliy NMNAT1 va iste’molchilar funksional notekislik yaratadi. Melatoninning mitoxondriya yo‘llari organellani umumiy «himoya» ko‘rsatkichi bilan ifodalash o‘rniga matriks va membranalarni ajratish zarurligini ko‘rsatadi.
De novo yo‘li L-triptofandan N-formilkinurenin, kinurenin, 3-gidroksikinurenin, 3-gidroksiantranilat va 2-amino-3-karboksimukonat semialdegidi, ACMS, orqali xinolinatga boradi; TDO/IDO, AFMID, KMO, KYNU va HAAO qatnashadi. ACMSD ACMS ni xinolinatga o‘z-o‘zidan sikllanishdan boshqa yo‘lga buradi; QPRT xinolinat + PRPP → NaMN + PPᵢ reaksiyasini bajaradi. NMNAT NaMN + ATP → NaAD + PPᵢ ni adenillaydi; glutaminga bog‘liq NADSYN1 NaAD + glutamin + ATP + H₂O → NAD⁺ + glutamat + AMP + PPᵢ reaksiyasini bajaradi. Yallig‘lanish IDO1 ni oshirib triptofan/kinurenin metabolitlari taqsimotini o‘zgartirishi mumkin, ammo bu barcha odamlarda «QPRT to‘silishi» va neyrotoksik xinolinat to‘planishini anglatmaydi. «1 mg niatsin ekvivalentiga 60 mg triptofan» — ayrim sharoitdagi oziq-ovqat massa koeffitsiyenti, bir NAD⁺ uchun 60 triptofan molekulasi degan stexiometriya emas.
Preiss–Handler nikotin kislotasidan boshlanadi: NA + PRPP —NAPRT→ NaMN + PPᵢ; keyingi NMNAT va NADSYN1 de novo bilan umumiy. Qayta foydalanishda NAM + PRPP —NAMPT→ NMN + PPᵢ; NMN + ATP —NMNAT→ NAD⁺ + PPᵢ. NAMPT PRPP, ATP va transkripsiya boshqaruviga bog‘liq; «tezlikni cheklovchi» deyish rejim va to‘qimaga qarab o‘zgaradi. NR NRK1/2 orqali kiradi: NR + ATP → NMN + ADP. Oziq-ovqat prekursorlarining katta qismi hujayra NAD⁺ iga aylanguncha ichak va qonda o‘zgaradi; kapsula formulasi «NMN har hujayraga bevosita yetkaziladi» degan dalil emas. NMNAT1 asosan yadroda, NMNAT2 sitozol/vezikulalarda va akson uchun muhim; NMNAT3 taqsimoti va matriksdagi vazifasi turlar hamda to‘qimalarda farq qiladi. SLC25A51 orqali ham NAD⁺ matriksga kiradi. Qayta foydalanishning bitta foizi barcha to‘qimaning sutkalik aylanishiga universal emas. NAMPT ning CLOCK:BMAL1/SIRT1 bilan tajribaviy aloqasi inson uchun eng yaxshi qabul soatini belgilamaydi. B3 shakllari va doza ta’sirlari niatsin va lipid almashinuvi maqolasida ajratilgan.
Jigar, mushak, yog‘, miya va buyrakdagi NAD⁺ ning yosh bilan pasayishi haqidagi ma’lumotlar turlicha; odamlarda barcha a’zolarni birlashtirgan qat’iy foizli qator yo‘q. Hujayra tarkibi, namuna vaqti, muzlatish, ekstraksiya va NAD⁺, NADH yoki yig‘indisi o‘lchanishi konsentratsiyani o‘zgartiradi; bir to‘qimadagi hujayralar zaxirasi turlicha. Inson miya ³¹P-MRS usuli in vivo to‘qima signallarini baholaydi, lekin fazoviy aniqlik va spektr ajratilishi cheklangan; neyron sitozoli bilan mikrogliyani alohida o‘lchamaydi. Teri biopsiyasida ham hujayra va hujayralararo muhit ulushlari har xil. Yosh bilan bog‘liqlik NAD⁺ pasayishi sarkopeniya, steatoz yoki kognitiv pasayishning birlamchi sababi ekanini isbotlamaydi: kasallik, yallig‘lanish va tarkib o‘zgarishi o‘lchangan natijaga sabab bo‘lishi mumkin. Taqqoslashda mos usullar va hujayra tarkibini nazorat qilish kerak.
Gomes va hamkasblari sichqondagi NAD⁺ pasayishini SIRT1 orqali HIF-1α nazorati susayishi, c-MYC/TFAM o‘zgarishi va yadro/mitoxondriya nafas oqsillari ekspressiyasi nomutanosibligi bilan bog‘ladi. Kislorod normal paytda HIF-1α faolligi «psevdogipoksiya» deb ataldi, lekin har qarigan insonda majburiy nafas qulashi ko‘rsatilmagan. HIF-1α faqat deatsetillanish bilan boshqarilmaydi: prolil gidroksilazalar O₂, Fe²⁺ va 2-oksoglutarat ishlatadi; pVHL gidroksillangan oqsilni tanib parchalanishga yo‘naltiradi. Deatsetillanish transkripsiya faolligini o‘zgartirishi mumkin, ammo oqsil to‘planishi va promotorga ta’sir alohida darajalardir. TFAM mitoxondriya DNK sini joylaydi va transkripsiyalaydi; u 13 nafas polipeptidini kodlaydi, lekin «barcha 13 transkripsiyasi to‘xtaydi» deyish ortiqcha. II kompleks butunlay yadroda kodlanadi, shuning uchun barcha OXPHOS yo‘qolmasdan nomutanosiblik bo‘lishi mumkin. Klinik xulosa uchun bir inson to‘qimasida kompartment zaxiralari, HIF-1α, transkript va nafas o‘lchanishi kerak, sichqon mexanizmi yo‘nalishi yetarli emas.
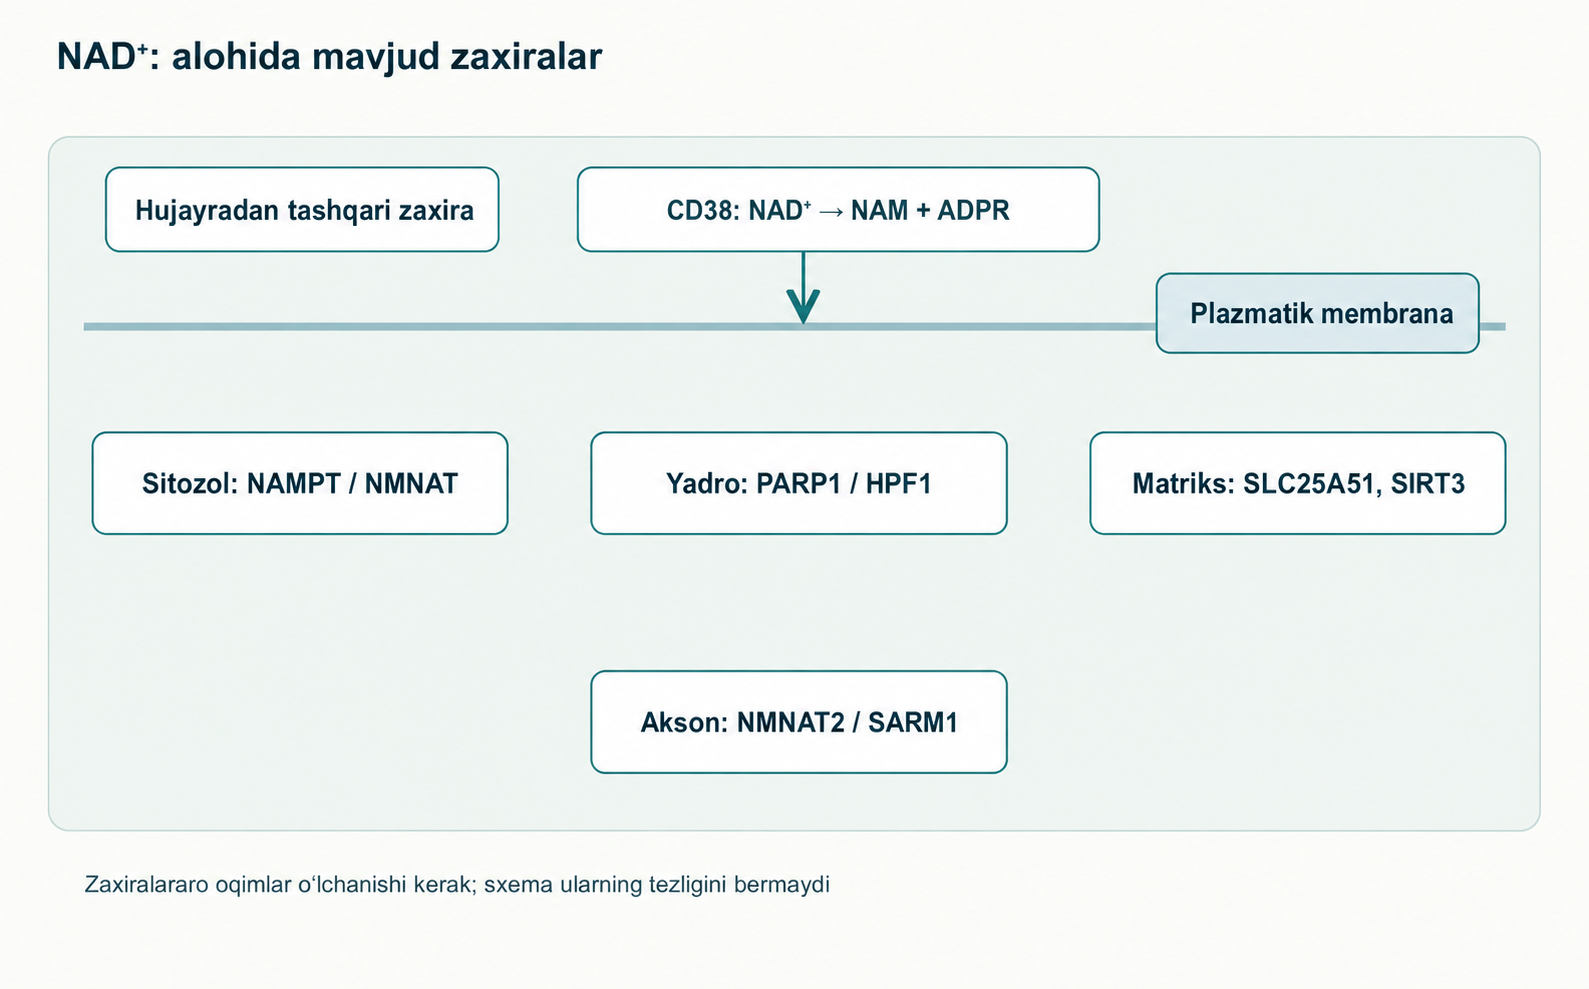
CD38 ning odatiy shakli II turdagi membrana oqsilidir: qisqa N-uchi sitozolga qaragan, bitta transmembran spiral esa katta glikozillangan katalitik domenni hujayra tashqarisida ushlab turadi. Ektodomen kristallografiyasi ADP-ribozil siklazalar oilasiga xos buklanish, disulfid ko‘priklar va NAD⁺ ni nikotinamid–riboza bog‘i uzilishi uchun joylashtiradigan cho‘ntakni ko‘rsatadi. Glu226 kataliz uchun juda muhim; yonidagi Glu146, Trp189 va boshqa qoldiqlar bog‘lanish hamda mahsulot tanlanishiga ta’sir qiladi. Faol qoldiq mutatsiyasi va ferment tuzilishi mexanizmni muhokama qilishga imkon beradi, biroq barqaror kovalent «Glu226–riboza» oraliq birikmasi yoki sanalgan har bir qoldiqning majburiy roli haqidagi batafsil da’vo bevosita tuzilish va kinetika ma’lumotlarini talab qiladi. Suv kirishi, pH va nikotinamid qismining holati gidroliz bilan sikllanish o‘rtasidagi tarmoqlanishni o‘zgartiradi. To‘liq oqsil hujayra yuzasi markeri va hujayralararo aloqalar ishtirokchisi ham bo‘lgani uchun CD38 nokauti fenotipini faqat NADase reaksiyasi bilan tushuntirish shart emas.
Gidrolaza reaksiyasi NAD⁺ + H₂O —CD38→ NAM + ADPR ko‘rinishida; muqobil molekula ichidagi hujum NAD⁺ —CD38→ NAM + siklik ADPR, cADPR, beradi. Inson CD38 fermenti uchun ayrim in vitro sharoitlarda gidroliz ancha ustun, lekin mahsulotlar nisbati substrat, pH va o‘lchash tizimiga qarab o‘zgaradi. «Barcha to‘qimalarda aniq 99%» yoki «bitta cADPR uchun har doim yuzta NAD⁺ yo‘qoladi» deyish noto‘g‘ri. CD38 asos almashinuvini ham katalizlaydi: NADP⁺ + nikotin kislotasi → NAADP + NAM, ayniqsa kislotali muhitda. cADPR hujayra ichidagi depolardan Ca²⁺ chiqarilishini boshqarish bilan bog‘liq; NAADP esa ikki porali TPC kanallari va yordamchi oqsillar qatnashadigan lizosoma–endosoma tizimlari orqali kalsiy javoblarini boshlaydi. Vositachilarni hisobga olmay NAADP ni bevosita «TPC agonisti» deyish mexanizmni haddan tashqari soddalashtiradi. CD38 mahsulotlari chiqindi emas: mos konsentratsiyada ular signal bo‘lib xizmat qiladi, fermentni butunlay to‘sish esa immun funksiyani o‘zgartirishi mumkin.
CD157, BST1, shu oilaga kiradi, ammo plazmatik membrananing tashqi yuzasida II turdagi spiral bilan emas, glikozilfosfatidilinozitol langari bilan ushlanadi. Uning katalitik xususiyatlari va hujayra aloqalari CD38 dan farq qiladi; shu sabab o‘lchangan BST1 ekspressiyasi hujayra ichidagi NAD⁺ ning mutanosib yo‘qolishiga teng emas. CD157 ayrim immun va stromal hujayra guruhlarida mavjud bo‘lib, aloqalar, migratsiya va mahalliy kalsiy signallarida qatnashishi mumkin. Turli sharoitlar uchun yagona kcat yoki Panet hujayrasidagi CD157 dan Lgr5⁺ kripta tiklanishigacha bo‘lgan sababiy zanjir bevosita tajribasiz yoshga oid NAD⁺ kamayishining tasdiqlangan izohi deb qabul qilinmasligi kerak. Funksional tajribalar oqsilning katalitik va yopishishdagi vazifalarini ajratishi lozim.
CD38 molekulalarining ko‘pchiligida katalitik domen hujayra tashqarisiga qaragan, o‘lchanadigan NAD⁺ ning asosiy qismi esa hujayra ichida. Shuning uchun «yuzadagi CD38 barcha yadro NAD⁺ ini yutib yubordi» degan to‘g‘ridan-to‘g‘ri sxema topologiyaga zid. Chegaradan o‘tuvchi ehtimoliy ko‘priklar turlicha: CD38 hujayradan tashqari NAD⁺ va NMN ni ADPR yoki riboza-5-fosfat hamda NAM gacha qayta ishlaydi; hujayralar boshqariladigan kanallar orqali yoki shikastlanganda NAD⁺ chiqarishi mumkin; ayrim tajriba tizimlarida katalitik domeni ichkariga qaragan teskari CD38 joylashuvi tasvirlangan; ichki membranalardagi CD38 substratga boshqacha kira olishi mumkin. Har bir mexanizm uchun oqsil joylashuvi, membrana butunligi va substrat oqimi dalillari kerak. Teskari joylashgan CD38 ning qat’iy ulushi, Cx43/Panx1 orqali doimiy NAD⁺ chiqarilishi va endotsitozlangan CD38 ning nukleoplazmaga borishi alohida o‘lchovlarni talab qiladi. NR ni CD38 bir xil parchalaydigan NMN bilan tenglashtirib bo‘lmaydi: substratga xoslikni aniqlash zarur. Hujayradan tashqari NAD⁺ va NMN miqdori mahalliy ravishda tez o‘zgaradi, uni bitta sitozol soni bilan taqqoslash to‘qima oqimini hisoblamaydi.
Camacho-Pereira va hamkasblarning sichqon tajribalarida Cd38 genetik yo‘qligi qarishda NAD⁺ saqlanishi va mitoxondriya ko‘rsatkichlari o‘zgarishi bilan birga kuzatilgan. Chini va Covarrubias ning keyingi ishlari yoshga oid CD38 faolligi oshishini miyeloid hujayralar va senessent hujayralarning sekretor muhiti bilan bog‘lagan. Ayrim to‘qimalarda CD38⁺ makrofaglar NAD⁺ ning muhim iste’molchisi bo‘ladi; bu barcha CD38 faqat makrofaglarda yoki har bir shunday hujayra «M1» degani emas. Senessensiyaga bog‘liq sekretor fenotip, SASP, turlicha: ta’sir va to‘qimaga qarab IL-6, IL-1β hamda boshqa molekulalarni o‘z ichiga oladi; IFN-γ ni har bir senessent hujayraga avtomatik nisbat berib bo‘lmaydi. CD38 induksiyasi yallig‘lanish transkripsiya tarmoqlari orqali kechishi mumkin, ammo majburiy CpG demetillanishi uning bir necha baravar oshishining universal sababi sifatida isbotlanmagan. Sichqon nokauti immun tizim rivojlanishini ham o‘zgartiradi, shuning uchun fenotipga katalitik sarf hissasini alohida ajratish kerak. Nashr qilingan apigenin va CD38 tahlilida biokimyoviy to‘sish bilan insondagi ta’sir farqi muhokama qilinadi.
Yadrodagi PARP1 uchta N-uchdagi rux bog‘lovchi modulni, yadroga joylashish va o‘zini modifikatsiyalash sohasi hamda BRCT domenini, WGR modulini va C-uchdagi katalitik domenni birlashtiradi. Zn1/Zn2 DNK uzilishi tuzilishini taniydi; WGR DNK bilan bog‘lanishni katalitik qismga ulaydi; spiral HD subdomeni esa faollashishgacha substrat kirishini cheklaydi. Katalitik qism NAD⁺ dan ADP-ribozani ko‘chirib NAM chiqaradi. Bu tuzilish DNK shikastlanishi nega aynan yadroda kofaktor sarfini keskin oshirishini tushuntiradi. PARP2 ning tanish tuzilishi boshqacha va u ham ta’mirlashda qatnashadi; PARP1 ning umumiy faollikdagi ulushi stress turi va hujayra testiga bog‘liq, doimo 90% emas.
DNK uzilishiga bog‘lanish Zn modullari, WGR va HD ni yaqinlashtirib, faol markaz tormozlanishini susaytiradi. HPF1 PARP1/2 ning katalitik yuzasini to‘ldiradi va gistonlar hamda boshqa oqsillarning serin bo‘yicha ADP-ribozillanishiga yordam beradi; HPF1 Glu284 qoldig‘i shu xoslik uchun muhim. Boshlanish: oqsil–Ser–OH + NAD⁺ → oqsil–Ser–ADPR + NAM; uzayish: oqsil–ADPRₙ + NAD⁺ → oqsil–ADPRₙ₊₁ + NAM. Ayrim zanjirlar tarmoqlanadi, ularning uzunligi va ulushi ferment hamda sharoitga bog‘liq. PARG polimerning riboza–riboza bog‘larini uzadi, seringa bog‘langan oxirgi ADP-ribozani chiqarish esa ARH3 bilan bog‘liq. Shu sabab «PARG reaksiyaning barcha izini butunlay yo‘qotadi» deyish aniq emas. PAR shikastlanishga javob oqsillarini jalb qiladi va xromatin aloqalarini o‘zgartiradi; barcha vazifasi DNK ning elektrostatik itarilishiga teng emas. XRCC1, POLβ va LIG3 tegishli sharoitda bir zanjirli uzilishlar va asoslarni eksizion ta’mirlashda qatnashadi.
8-oxo-dG, apurin joylar, bir zanjirli uzilishlar va disfunksional telomerlar shikastlanishga javobning turli qismlarini faollashtiradi. Oksidlangan asos mavjudligi PARP1 uni bevosita sezadi degani emas: asoslarni eksizion ta’mirlash avval asosni qayta ishlaydi va oraliq uzilishlar hosil qiladi. Telomer o‘choqlari ham erkin DNK uchlari oqimiga teng emas. Kuchli genotoksik ta’sirda PARP1 NAD⁺ ni tez sarflashi mumkin; PARG ADPR polimerini monomer mahsulotlarga aylantiradi, ammo NAD⁺ ni avtomatik tiklamaydi. Kamayish hajmi shikastlanish kuchi, NAMPT/NMNAT faolligi, mavjud ATP va vaqtga bog‘liq. «Oddiy qarishda bir necha soatda 80–90%» degan universal da’vo o‘tkir modellardan ekstrapolyatsiya qilingan. Oddiy qarishda ortiqcha faollik isbotlanmasdan PARP1 ni cheklash xavfli: ferment genomni saqlash uchun kerak.
PARP1 haddan tashqari faollashganda erkin PAR zanjirlari va kuchli NAD⁺ sarfi energiya ta’minoti buzilishi bilan birga kelishi mumkin. Tasvirlangan tajriba yo‘lida PAR mitoxondriyadan AIF chiqarilishiga yordam beradi, AIF esa MIF bilan ta’sirlashadi; MIF nukleaza faolligi xromatinning yirik ko‘lamda parchalanishida qatnashadi. Bu klassik kaspazali apoptozdan farq qilib, partanatos deb ataladi. Chiqarilishidan oldin AIF mitoxondriyaning ichki membranasi bilan funksional bog‘langan; uni faqat tashqi membranada joylashgan deyish noto‘g‘ri. Kalpainlar, MIF va fragment o‘lchami roli modelga bog‘liq, kuchli shikastlanish boshqa o‘lim yo‘llarini ham bir vaqtda faollashtirishi mumkin. NAD⁺ kamayishi partanatos tashxisi emas: PAR-ga bog‘liqlik, AIF ko‘chishi, MIF ishtiroki va muqobil yo‘llarni chiqarib tashlash kerak. NAD⁺ ni NMN dan qayta sintez qilish NMNAT bosqichida ATP sarflaydi, ammo har sikl barcha hujayra ATP sini avtomatik va qaytmas «yoqib yuboradi» deb bo‘lmaydi. PARP ingibitorlari bilan davolashda ularning o‘smaga qarshi ta’siri DNK da PARP ushlanib qolishi va gomologik ta’mir nuqsonlaridagi sintetik letallikni ham o‘z ichiga olishini unutmaslik kerak; bu shunchaki NAD⁺ tejash emas.
SARM1 N-uchdagi boshqaruvchi ARM, juft oligomerlanish SAM domenlari va NADase faolligi bor C-uchdagi TIR domenini o‘z ichiga oladi. Tuzilish tadqiqotlari halqasimon oktamerni ko‘rsatadi; bazal holatdagi domenlararo aloqalar katalitik TIR qismlarining samarali birikishini cheklaydi. Bitta «yopiq» kristallografik tuzilish tirik aksonning barcha holatini tasvirlamaydi: nukleotidlar, hamkor oqsillar bog‘lanishi va shikastlanish konformatsiyani o‘zgartiradi. SARM1 katalizi aksotomiya ortidan mahalliy degenerativ javob uchun muhim, jigar yoki qondagi har qanday yoshga oid NAD⁺ pasayishini tushuntirish uchun emas.
Qisqa umrli NMNAT2 aksonga tashilib, NMN + ATP → NAD⁺ + PPᵢ reaksiyasini bajaradi. Shikastlanishdan keyin yetkazilish to‘xtashi va NMNAT2 parchalanishi mahalliy NMN/NAD⁺ nisbatini o‘zgartiradi. NMN va NAD⁺ ning ARM cho‘ntagiga raqobatli bog‘lanishi SARM1 o‘zini tormozlashiga ta’sir qiladi; NMN oshishi va NAD⁺ kamayishi faollashishni ehtimolroq qiladi. NMNAT2 ubikvitinlanishi va tashilishi bir necha boshqaruvchiga bog‘liq, shuning uchun yagona majburiy Phr1/Highwire zanjiri yoki bitta qat’iy yarim parchalanish davrini har aksonga tatbiq qilib bo‘lmaydi. Reaksiya sxemasini vaqt bo‘yicha mahalliy nisbat o‘lchovi bilan to‘ldirish kerak; bitta hujayra kulturasining konsentratsiya chegaralarini barcha inson nervlariga ko‘chirish yetarli emas.
Faol SARM1 TIR NAD⁺ ni NAM va ADPR hosil qilib sarflaydi, siklik mahsulotlar ham bo‘lishi mumkin. Energiya tanqisligi va SARM1 metabolitlari kalsiy signallari o‘zgarishiga yordam berishi mumkin; keyin faollashgan kalpainlar spektrin, neyrofilamentlar va sitoskeletning boshqa tarkiblarini parchalaydi. Tajribada SARM1 to‘silishi ko‘pincha kesilgan aksonning distal qismini morfologik saqlaydi, biroq bu o‘tkazuvchanlik tiklanishi, neyron tanasi regeneratsiyasi yoki ALS, Altsgeymer kasalligi va glaukomani universal davolashni isbotlamaydi. Muayyan aksotomiyadan keyingi kamayish tezligi barcha neyropatiyada «20–40 daqiqada nolga tushish» degan umumiy qoida emas. Valler degeneratsiyasi mahalliy shikastlanishning ko‘p bosqichli natijasi; SARM1 unda muhim, ammo sharoitga bog‘liq sababiy yo‘ldir.
Alohida ferment va soddalashtirilgan reaksiya uchun v = Vmax·[S]/(Km + [S]) tezlikning mavjud substratga bog‘liqligini ifodalaydi. Km berilgan sharoitda Vmax ning yarmidagi konsentratsiyadir; ayniqsa murakkab mexanizm va bog‘langan reaksiyalarda u muvozanatdagi bog‘lanish yaqinligi Kd bilan bir xil emas. Tashqi yuzadagi CD38, yadrodagi PARP1, matriksdagi SIRT3 va aksondagi SARM1 Km larini bir idishda turgandek solishtirish mumkin emas. Bir kompartment ichida ham tezlik faol ferment miqdori, oqsil substrati, NAM ingibitori, pH, posttranslyatsion o‘zgarishlar va erkin NAD⁺ ga kirishga bog‘liq. SIRT6 uchun atsil guruh turi va aktivatorlar ayniqsa muhim; bitta «SIRT6 Km qiymati» barcha reaksiyasini ifodalamaydi. Turli fermentlar uchun o‘zaro mos bo‘lmagan sharoitda olingan aniq Km oraliqlari NAD⁺ fiziologik sarfining umumiy tartibini yaratmaydi.
Mahalliy kompartmentda NAD⁺ o‘zgarishini konseptual ravishda d[NAD⁺]/dt = J_sintez + J_kirish − J_CD38 − J_PARP − J_SIRT − J_SARM1 − J_boshqa deb yozish, NAD⁺⇄NADH redoks o‘zgarishi va hududlararo almashinuv bilan to‘ldirish mumkin. Har oqimni o‘lchash yoki asoslash kerak; uning kattaligini bitta Km nisbatidan chiqarib bo‘lmaydi. Erkin NAD⁺ uchun 400 va 120 µM hamda ixtiyoriy Km=20 yoki 250 µM tanlangan matematik misol egri chiziq shaklini ko‘rsatadi, yosh hujayraning qari hujayraga o‘tishi o‘lchovi emas. Substrat kamayganda Vmax o‘zgarmagan har qanday ferment tezligi pasayadi; CD38 yoki PARP1 jami oqimni faqat faol miqdori yoki rag‘batlanishi o‘zgarganda oshirishi mumkin. Ular sirtuinlarni avtomatik «o‘chirmaydi»; iste’mol aynan shu mavjud zaxirada qayta foydalanish kompensatsiyasidan ortishini ko‘rsatish zarur. Yadro PARP1 va matriks SIRT3 transport hamda metabolizm orqali bog‘langan, demak raqobat bitta molekula uchun bevosita to‘qnashuv emas, vositali aloqadir.
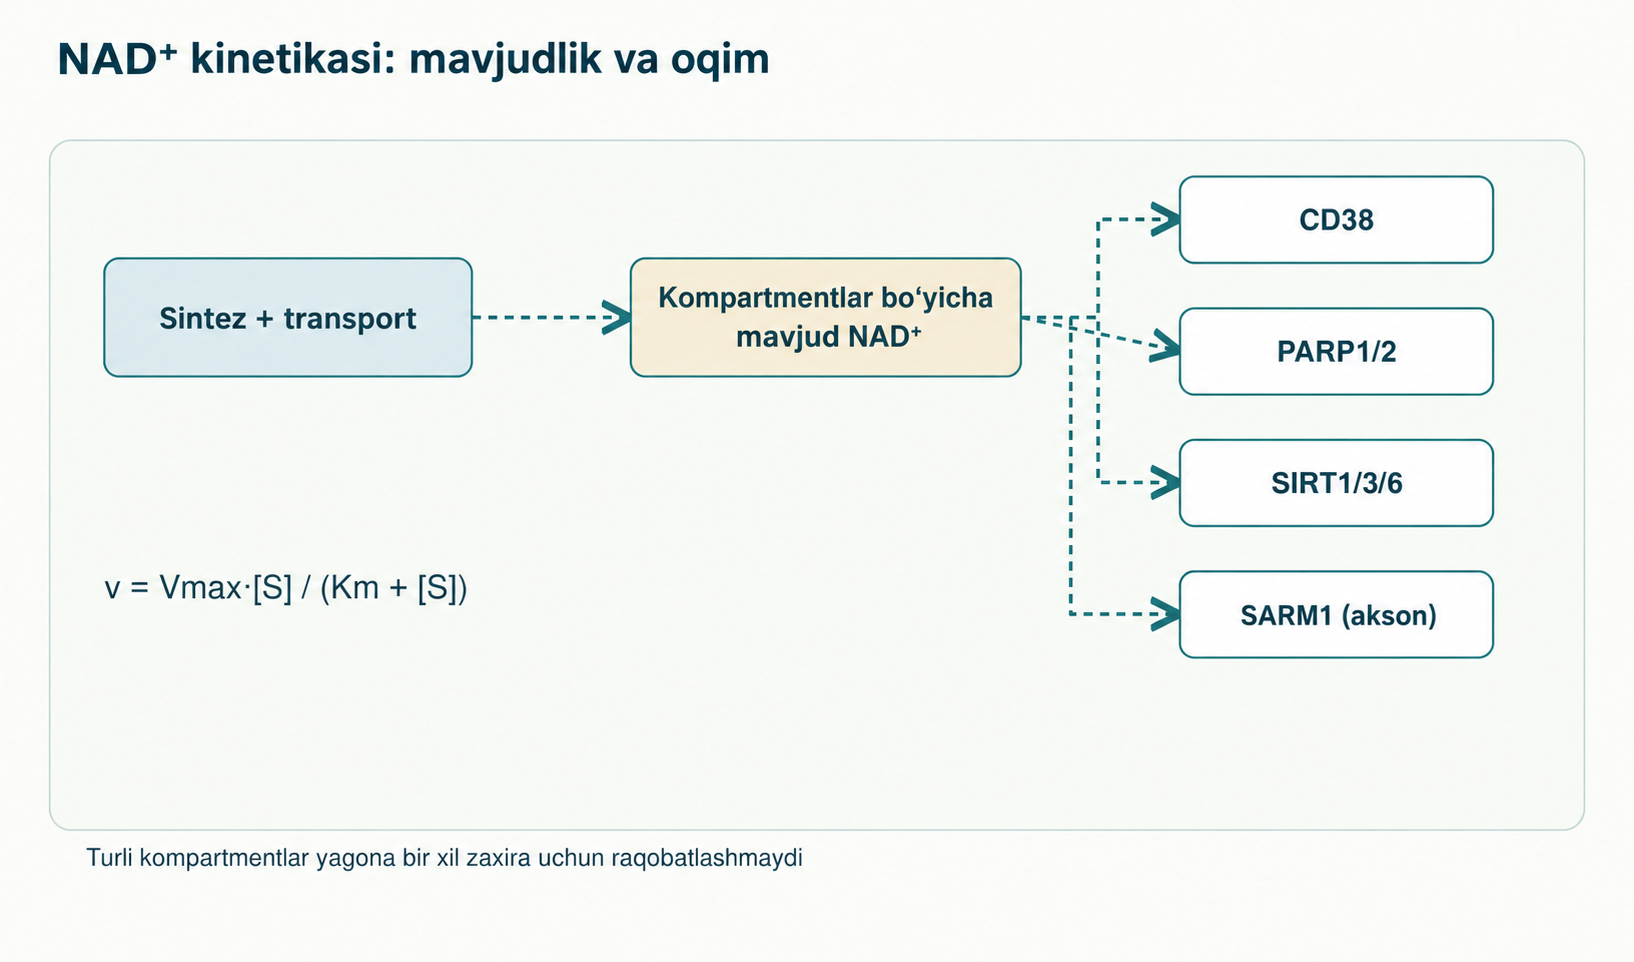
SIRT1 orqali PGC-1α, p53 va RelA/p65 deatsetillanishi, SIRT3-ga bog‘liq SOD2/IDH2 o‘zgarishlari va SIRT6-ga bog‘liq xromatin saqlanishi turli modellarda o‘rganilgan. PGC-1α bir necha omil orqali mitoxondriya biogenezini muvofiqlashtiradi, biroq uning atsetillanishi GCN5, oziqlanish signali va to‘qima faolligiga ham bog‘liq; deatsetillanish yo‘qolishi organellalar yangilanishining «to‘liq to‘xtashi» emas. SOD2 uchun aniq qoldiqlar va ferment faolligi, IDH2 uchun esa NADPH hosil bo‘lishi muhim; universal 80% faollik yo‘qolishini belgilash kerak emas. p53 deatsetillanishi stress javobini o‘zgartiradi, shu bois DNK shikastida SIRT1 ni ixtiyoriy kuchaytirish ham albatta foydali emas. RelA Lys310 atsetillanishining transkripsiyaga ta’siri har bir sitokin NAD⁺ yetishmasligidan kelib chiqishini isbotlamaydi. SIRT6 H3K9/H3K56, LINE-1 bostirilishi va genom barqarorligi bilan bog‘liq; keyingi cGAS–STING ishtiroki muayyan hujayrada alohida isbot talab qiladi. Bu yo‘llar ta’sirlashishi mumkin, ammo bitta biomarkerdan «kam NAD⁺ → barcha sirtuinlar o‘chadi → barcha qarish belgilari» zanjiri kelib chiqmaydi.
Apigenin, kversetin va luteolin biokimyoviy tizimlarda CD38 NADase faolligini to‘sadi. Escande va hamkasblar apigenin uchun CD38 to‘silishi va hujayra hamda sichqonlarda NAD⁺-ga bog‘liq metabolizm o‘zgarishini ko‘rsatgan; IC₅₀ substrat, ferment konstruksiyasi va tahlil sharoitiga bog‘liq. Shu sabab tozalangan birikmaning mikromolyar faolligini og‘iz orqali qabuldan keyin to‘qimada erishiladigan erkin konsentratsiyaga tenglashtirib bo‘lmaydi. Glukuronidlanish, sulfatlanish, oqsillarga bog‘lanish va metabolit taqsimoti bunday ko‘chirishni murakkablashtiradi. Har bir flavonoid Glu226 bilan bevosita tegishadi degan da’vo aynan o‘sha modda uchun tuzilish yoki mutatsiya dalilini talab qiladi. Kversetin va luteolinning boshqa nishonlari ham bor; kversetinning taxminiy senolitik faolligi hujayra sharoiti va boshqa vositalar bilan birikishga bog‘liq. Apigeninning biokimyoviy mexanizmi, GABA signali va inson ma’lumotlari apigenin sharhida batafsil ajratilgan.
78c — CD38 ning tadqiqot uchun mo‘ljallangan kichik molekulali ingibitori. Tarragó va hamkasblar ishida qari sichqonlarga berilishi to‘qima NAD⁺ ini oshirib, ayrim metabolik va funksional ko‘rsatkichlarni o‘zgartirgan. Nanomolyar IC₅₀ ferment tahlili tizimini ifodalaydi, inson uchun doza, samaradorlik yoki xavfsizlikni emas. Selektivlikni CD157, boshqa NAD⁺ iste’molchilari va to‘qima konsentratsiyalarida aynan shu tajriba sharoitida tekshirish kerak; «hech qanday boshqa nishonga ta’sir qilmaydi» degan mutlaq da’vo asoslanmagan. Bu yerda 78c inson sarkopeniyasini oldini olishi yoki mitoxondriya funksiyasini tiklashini isbotlovchi klinik sinov yo‘q. Onkologiyada qo‘llanadigan CD38 ga qarshi antitana faqat katalitik to‘sishdan iborat bo‘lmagan immun va hujayra oqibatlariga ega; uni oziq-ovqat flavonoidiga teng deb bo‘lmaydi.
Olaparib va boshqa PARP ingibitorlari muayyan onkologik ko‘rsatmalar uchun qo‘llanadi. Gomologik rekombinatsiya nuqsonida ta’siri katalitik to‘sish va moddalarga qarab turli darajada shikastlangan DNK da PARP ni ushlab qolishni o‘z ichiga oladi. Bu foyda–zarar muvozanati sog‘lom insondagi taxminiy NAD⁺ sarfini kamaytirishdan tubdan boshqa. Miyelosupressiya va boshqa toksik ta’sirlar, dori o‘zaro ta’siri va o‘sma genomi sharoiti onkologik davoni qarish profilaktikasiga ko‘chirishni asossiz qiladi. Biroq teskari mutlaq da’vo — «PARP ning har qanday qisqa pasayishi darhol mutatsiyalarni ko‘paytiradi» — ham ma’lumotdan tashqarida: natija shikastlanish, PARP1/2, doza va boshqa ta’mir yo‘llariga bog‘liq.
Nikotinamid PARP reaksiyasi mahsuloti bo‘lib, in vitro NAD⁺ iste’mol qiluvchi fermentlarni cheklashi mumkin, lekin ayni vaqtda NAMPT orqali qayta foydalanish substratidir. Shu sabab NAM dozasini bitta IC₅₀ dan «PARP ni yumshoq sozlash» vositasi sifatida chiqarib bo‘lmaydi: turli to‘qima konsentratsiyalarida ikkala qarama-qarshi oqim o‘zgaradi. Kurkumin, resveratrol va boshqa polifenollar oksidlovchi stress modellarida o‘rganilgan; 8-oxo-dG markerining kamayishi insonda ta’mirni buzmasdan patologik PARP giperfaollashuvi bostirilishini isbotlamaydi. Profilaktik qo‘llash uchun DNK shikasti va tiklanishi, farmakodinamika hamda klinik natijaning bevosita ko‘rsatkichlari kerak bo‘lardi. B₃ ning oziq-ovqat shakllari va yuqori dozali nikotinamid farmakologiyasi niatsin maqolasida ajratilgan.
Jadval tadqiqot dizayni, o‘lchangan zaxira va xulosa chegarasini ajratadi: qondagi NAD⁺ oshishini qo‘shimcha o‘lchovsiz yadro, mushak matriksi yoki aksondagi erkin NAD⁺ konsentratsiyasiga ko‘chirish mumkin emas.
| Birlamchi tadqiqot | Ishtirokchilar va aralashuv | Aniqlangan natija | Isbotlanmagan jihat |
|---|---|---|---|
| Trammell va hamkasblar, 2016 | Sog‘lom odamlardagi kichik farmakokinetik kuzatuv, bir martalik NR dozalari | NR-ga bog‘liq metabolitlar paydo bo‘lishi va o‘lchangan qon NAD⁺ metabolomi oshishi; NAM/NAAD yo‘li va namuna vaqti muhim | Uzoq muddatli foyda, to‘qima tiklanishi va kasallik xavfi kamayishi |
| Martens va hamkasblar, 2018 | O‘rta va katta yoshli odamlarda NR ning randomizatsiyalangan kesishma sinovi, har bosqich olti hafta | Qon NAD⁺ oshishi va o‘rganilgan davrdagi ko‘taruvchanlik | Qon bosimi bo‘yicha kichik guruh signali izlanish xarakterida bo‘lib, gipertoniya davosini tasdiqlamaydi; klinik yosharish yoki tomir hodisalari kamayishi isbotlanmagan |
| Yoshino va hamkasblar, 2021 | Menopauzadan keyingi ortiqcha vazn/semizlik va prediabetli 25 ayol, o‘n hafta 250 mg/kun NMN | Giperinsulinemik euglikemik klemp bilan o‘lchangan skelet mushagi insulin sezgirligi yaxshilanishi va mushak signallari o‘zgarishi | Erkaklar va boshqa guruhlardagi ta’sir, diabet profilaktikasi va uzoq muddatli xavfsizlik |
| Pencina va hamkasblar, 2023 | Ortiqcha vazn/semizlikli 55–80 yoshdagi 32 kishi, 14 kun MIB-626 1000 mg kuniga bir yoki ikki marta yoxud platsebo | Qondagi NMN/NAD metabolitlari oshishi, qisqa muddatli ko‘taruvchanlik | Jismoniy, kognitiv va klinik natijalar samaradorligi hamda uzoq muddatli xavfsizlik |
NAM ning metillangan metabolitlari NNMT orqali oqim haqida ma’lumot beradi, lekin ularning paydo bo‘lishi o‘z-o‘zidan patologik SAM tugashi yoki gipergomotsisteinemiyani isbotlamaydi. Qon matritsasi, ekstraksiya usuli, LC–MS standartlari va dozadan keyingi vaqt o‘lchangan ta’sir kattaligini o‘zgartiradi. Dastlab vitamin tanqisligi, semizlik yoki to‘qima shikasti bo‘lgan ishtirokchilar har xil biologik vaziyatlardir. Yoshino ning ijobiy mushak natijasi bilan birga ayrim metabolik yakuniy ko‘rsatkichlarda ishonchli o‘zgarish bo‘lmagan klinik ishlar ham bor; qondagi har qanday NAD⁺ oshishini funksional yaxshilanish deyish mumkin emas. Jadval dozalari tadqiqot protokollarini tasvirlaydi, o‘quvchiga tavsiya emas.
Mexanistik gipoteza tushunarli: agar CD38 mavjud prekursor yoki NAD⁺ ni sarflasa, katalizini to‘sish NR/NMN ga javobni o‘zgartirishi mumkin. Ammo tegishli to‘qimada CD38 orqali oqimni, faol ingibitor mavjudligini va monoterapiyadan qo‘shimcha klinik foydani ko‘rsatish kerak. Tashqi yuzadagi CD38 barcha hujayra ichki molekulalariga erkin kira olmaydi; NR va NMN ning tashilish hamda ferment orqali o‘zgarish taqdiri boshqacha. «Har qanday NR/NMN ning 70–85% hujayragacha CD38 tomonidan yo‘q qilinadi» yoki birikma erkin NAD⁺ ni sirtuinlarning universal chegarasidan kafolatli oshiradi degan da’volar inson o‘lchovlari bilan tasdiqlanmagan.
NNMT NAM + SAM → 1-metilnikotinamid + S-adenozilgomotsistein reaksiyasini katalizlaydi; keyingi SAH metabolizmi gomotsistein bilan bog‘liq. Bu metil muvozanatining ehtimoliy bo‘g‘ini, biroq NR/NMN dan keyin muqarrar klinik SAM tugashi 1-metilnikotinamid oshishidan kelib chiqmaydi. Betain–gomotsistein metiltransferaza betainni asosan jigar va buyrakda gomotsisteinni qayta metillash uchun ishlatadi; har qanday prekursor bilan TMG qo‘shish isbotlangan standart emas va barcha to‘qimalarni noaniq xavfdan «sug‘urtalamaydi». NR/NMN + apigenin + TMG uchlik birikmasining funksional natijalar va xavfsizligini tasdiqlovchi tadqiqotlar bu yerda yo‘q. Uyqu va sirkadiyal ritm holati NAD⁺ metabolizmini o‘zgartirishi mumkin, ammo melatonin mexanizmlari ham bunday birikmaning universal jadvalini belgilamaydi.
Model tizimlarda senessent hujayralar SASP hosil qilishi, signallari esa qo‘shni miyeloid hujayralarda CD38 ni oshirishi mumkin. Muayyan senessent hujayralar sonini kamaytirish yoki sekretor fenotipini o‘zgartirish mahalliy NAD⁺ sarfini ehtimol o‘zgartiradi. Bu ikki aralashuvni aralashtirmaslik kerak: senolitik ta’sir tanlangan senessent hujayralarning ustun o‘limini, senomorfik ta’sir esa majburiy chiqarishsiz SASP o‘zgarishini anglatadi. Hech biri barcha to‘qimalarda CD38⁺ makrofaglarning tizimli yo‘qolishi yoki «M1 dan M2 ga» ikkilik aylanishni kafolatlamaydi.
Fizetin klinikagacha modellarda sharoitga bog‘liq senolitik va senomorfik faollik ko‘rsatgan, ammo muayyan kultura yoki sichqondan olingan molekulyar nishon va doza inson uchun xavfsiz «puls terapiyasi»ni isbotlamaydi. Dazatinib va kversetin ayrim biomarkerlar hamda ko‘taruvchanlikni baholovchi kichik ochiq klinik ishlarda o‘rganilgan; ular yoshga oid NAD⁺ kamayishini oldini olish, yashovchanlikni yaxshilash yoki kasallik profilaktikasini belgilamagan. Dazatinib sezilarli xavflari bo‘lgan retseptli o‘smaga qarshi dori. «Senessent hujayralar kamayishi → to‘qima CD38 pasayishi → NAD⁺ oshishi → klinik foyda» zanjirini alohida tajribalardan yig‘ish emas, mos to‘qima o‘lchovlari bilan bitta inson guruhida tekshirish kerak.
NAMPT va NAD⁺-ga bog‘liq jarayonlar tajriba to‘qimalarida sirkadiyal soat bilan bog‘langan. Bu har bir insonning barcha a’zosida qat’iy ertalabki NAMPT cho‘qqisi yoki NR/NMN ni ma’lum soatda och qoringa olish afzalligi isbotlanganini anglatmaydi. Apigeninning universal «tungi CD38 blokadasi» ham, taxminiy dozalarning isbotlangan uyqu yaxshilanishiga mosligi ham aniqlanmagan. Sutkalik ritm, oziqlanish, smenali ish, yosh va to‘qima turi fazani o‘zgartiradi; qabul vaqtini funksional yakuniy natijalar bo‘yicha klinik taqqoslash alohida vazifa bo‘lib qoladi.
NAD⁺ prekursorlari, polifenollar, TMG, senolitiklar va sirtuin aktivatorlarini qo‘shish bir nechta ta’sirlashuvchi gipotezani bildiradi, yagona tasdiqlangan protokolni emas. Hayvonning tajriba dozasini insonga avtomatik ko‘chirish yoki resveratrolni barcha SIRT1 substratlarining universal bevosita aktivatori deyish mumkin emas: natija aniq testga, jumladan fluoroforli substratga bog‘liq. Har modda va birikmaning xavfsizlik ko‘rsatkichlari o‘z tartibga solish va klinik sharoitida baholanishi kerak.
Mexanizmni o‘rganish uchun NAD⁺/NADH o‘lchovining oldindan belgilangan matritsasi va usuli, tozalik nazoratli fraksiyalash, namuna vaqti, NR/NMN/NAM/NAAD/1-MNA, metil tugashi gipotezasida esa oziqlanish va buyrak funksiyasini hisobga olgan SAM/SAH/gomotsistein kerak. Umumiy yallig‘lanish markerlari, hs-CRP va IL-6, jigar va buyrak funksiyasi hamda klinik natijalar boshqa savollarga javob beradi; ular CD38 yoki PARP ning xos testi emas. Standartlashtirilgan usul va natijaga yo‘naltirilgan tadqiqotsiz mononuklear hujayralarda NAD⁺ oshish foizi, «ideal» gomotsistein yoki bitta hs-CRP chegarasini sog‘lom odam uchun davolash maqsadi deb belgilab bo‘lmaydi. Laboratoriya og‘ishlari uyda tuzilgan TMG oshirish algoritmi emas, klinik vaziyat asosida talqin qilinishi kerak.
NAD⁺ redoks kimyosini ADP-riboza ko‘chirish va deatsetillanish reaksiyalari bilan bog‘laydi. Har manba va iste’molchi hissasi to‘qima, hujayra holati va kompartmentga qarab o‘zgaradi. CD38 yoshga oid immun sharoitlarda ayniqsa muhim tajribaviy rolga ega; PARP1 genomni himoya qiladi, ammo og‘ir shikastda katta yadro zaxirasini sarflashi mumkin; SARM1 shikastlangan aksonning mahalliy dasturini boshlaydi. Bu mexanizmlar har a’zo qarishining yagona majburiy sababiga qo‘shilib ketmaydi. Mavjud substrat va qarama-qarshi oqimlar o‘lchanmaguncha fermentlar Km nisbati NAD⁺ uchun umumiy ustuvorlikni belgilamaydi.
Insondagi NR/NMN ishlari eng ishonchli tarzda o‘rganilgan doza va muddatlarda o‘lchash mumkin bo‘lgan qon metabolitlari o‘zgarishini ko‘rsatadi; ayrim funksional signallar guruh va dizayn bilan cheklangan. Qon NAD⁺ oshishi ham, sichqon CD38 yoki SARM1 yo‘liga muvaffaqiyatli aralashuv ham inson qarishi sekinlashishini isbotlamaydi. Keyingi ilmiy qadam — anatomik jihatdan belgilangan mexanizm, to‘qimadagi NAD⁺ oqimi, oldindan tanlangan funksional natija va yetarli xavfsizlik bahosini bitta tadqiqotda bog‘lash. Bu aloqa yo‘q ekan, qo‘shma sxemalar klinik tavsiya emas, gipoteza bo‘lib qoladi.
Tahririy asos — 37 bibliografik yozuvli taqdim etilgan qo‘lyozma. Mexanistik bo‘g‘inlar uchun CD38, PARP1–HPF1 va SARM1 bo‘yicha maqsadli tanlangan birlamchi ishlar hamda NR/NMN klinik protokollari ishlatilgan; sharhlar kompartmentlarni tushunishga yordam beradi, biroq birlamchi dalilni almashtirmaydi. Bu tanqidiy narrativ sharh, tizimli qidiruv, GRADE bahosi yoki tashqi taqriz emas. Barcha dozalar va ro‘yxatdan o‘tgan sinovlarni to‘liq taqqoslash bajarilmagan.
2026-yil 4-oktabrdagi saqlangan maqsadli tekshiruv Pencina uchun muhim bibliografik xatoni aniqlagan: tasvirlangan metabolom tadqiqoti 2023-yilda The Journals of Gerontology: Series A da chiqqan, 1000 mg kuniga bir yoki ikki marta qo‘llangan 14 kunlik MIB-626 tajribasidir. Uning o‘rniga alohida fiziologik nashr qo‘yilmagan. Yoshino «giperglikemik euglikemik» emas, giperinsulinemik euglikemik klemp ishlatgan. Sichqon modellari va insonning qisqa muddatli biomarkerlari qo‘shma geroproteksiya protokolini tasdiqlamaydi. Ushbu davom ettirish saqlangan ilmiy mazmunni tarjima qilib saqladi; yangi tizimli adabiyot qidiruvi yoki tashqi taqriz o‘tkazilmadi.
Yo‘q. Qon hujayralari, yadro, mitoxondriya matriksi va akson turli mavjud zaxiralarga ega; bevosita to‘qima o‘lchovi va funksional natija kerak.
Bunday birikmaning klinik ta’siri va xavfsizligi aniqlanmagan. CD38 va NNMT yo‘llari o‘zaro ta’siri mexanistik gipoteza bo‘lib qoladi.
PARP DNK ta’mirida qatnashadi; onkologik ingibitorlar o‘ziga xos mexanizm va xavflarga ega, sog‘lom guruhda profilaktik foydasi isbotlanmagan.