SOD2: марганец, митохондрия, SIRT3 және супероксид — NutriFit
SOD2 және марганец: митохондриялық дисмутация, SIRT3 және антиоксидант қорғаныс шектері
MnSOD құрылысы, матрикске импорт, каталитикалық цикл және пероксидазалармен байланыс. NO бәсекесі, SIRT3, rs4880, тапшылық модельдері мен SOD2 араласуының клиникалық шектері.
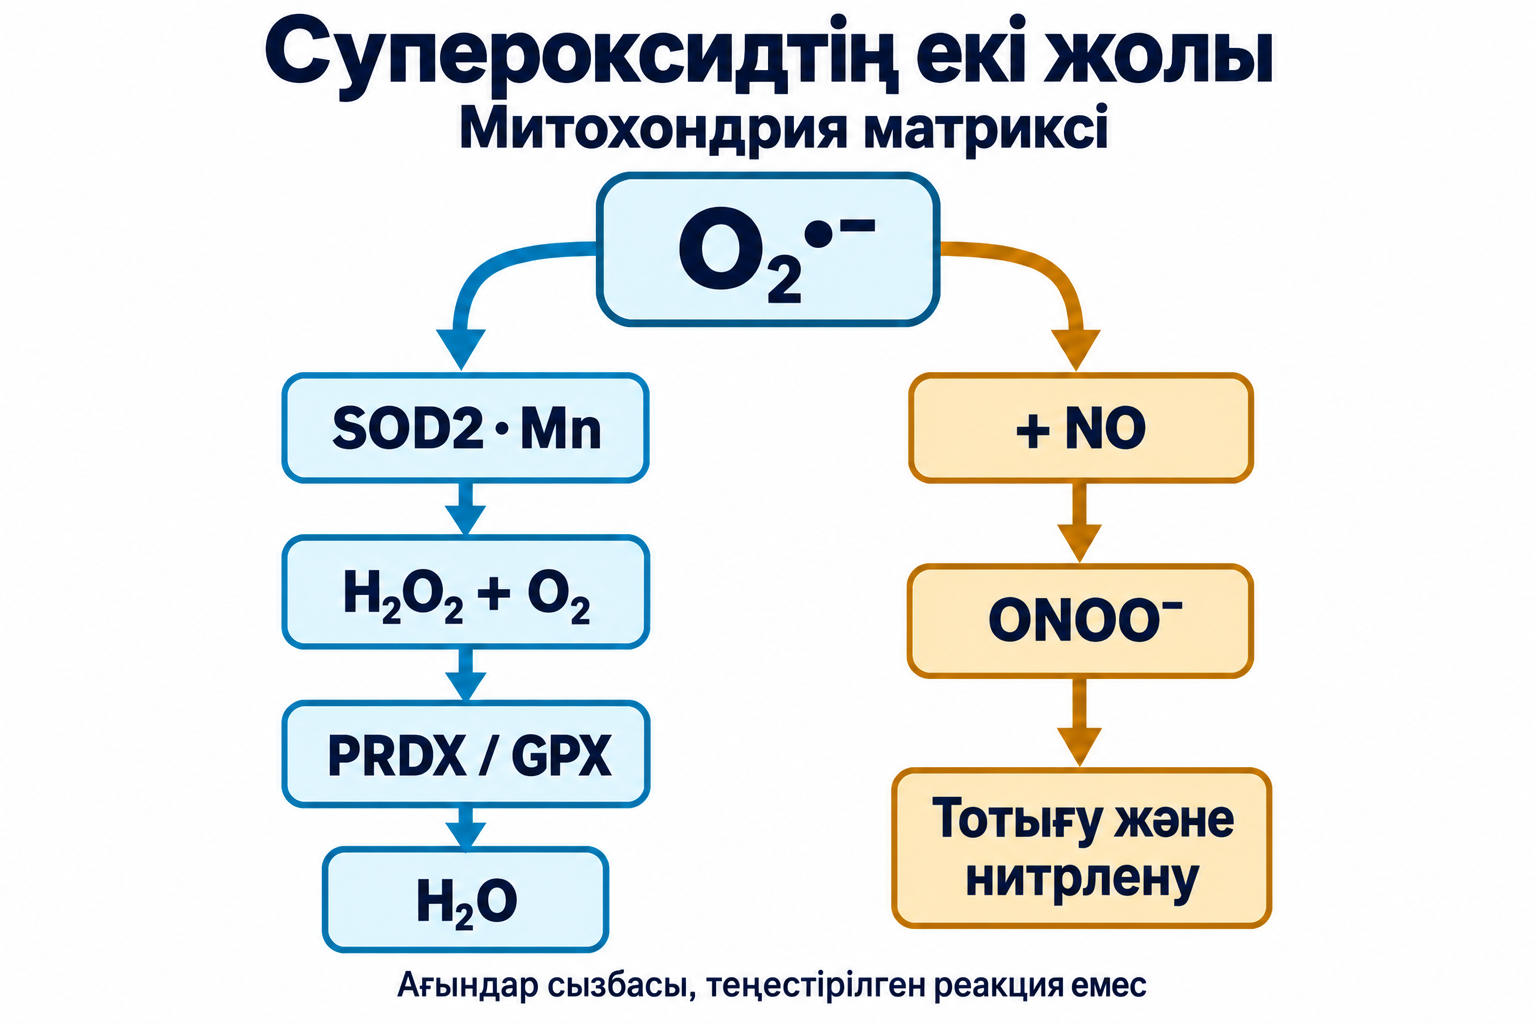
Митохондрия оттегін суға дейін тотықсыздандырады әрі оның толық емес тотықсыздануына жағдай жасайды. Электрон тасымалдаушылардың қалыпты тізбегінен шықса, супероксид — O2∙− түзіледі. Оның қаупі тек мөлшеріне байланысты емес: мембрананың қай жағында орналасқаны, темір-күкірт орталықтарына қолжетімділігі және азот оксидімен кездесуі маңызды. Марганецті супероксиддисмутаза, MnSOD немесе SOD2, осы жергілікті ортада супероксидті оттегі мен сутек пероксидіне айналдырады.
Бұл айналу бүкіл тотығу жүктемесін жоймайды. Жүктеме келесі буынға — матрикстің пероксидазалары мен тотықсыздандыру жүйелеріне беріледі. Сондықтан SOD2 тыныс алу тізбегімен, марганец алмасуымен, NADPH-тәуелді қалпына келумен және ақуыз реттелуімен бірге қарастырылады. Осы байланыс ферменттің тышқандарда болмауының ауыр салдарын да, бір антиоксидант белсенділігін арттырудың адамға дәлелденген ем болмауын да түсіндіреді.
Супероксид қайда түзіледі және әртүрлі SOD не үшін керек
Оттегі, электрон және компартмент
Негізгі электрондық күйінде молекулалық оттегінің спиндері параллель екі жұптаспаған электроны бар. Бұл триплетті күй кейбір органикалық молекулалармен тікелей әрекеттесуді шектеп, бір электрондық жолдарды маңызды етеді. Алғашқы қадам былай жазылады:
O2+e−→O2∙−
Супероксид кез келген субстраттың әмбебап күшті тотықтырғышы емес. Белгілі металл орталықтарымен және NO∙ радикалымен реакциялары, сондай-ақ кейінгі тотықтырғыштардың түзілуі ерекше маңызды. Тыныс алу тізбегінде оттегінің бір электрондық тотықсыздануы флавин және хинон орталықтарында жүруі мүмкін. I кешенде флавинге (IF) және убихинонға (IQ) қатысты орындар, III кешенде Qo орны ажыратылады. Басқа митохондриялық көздер де бар, сондықтан ішкі мембрананы жасушалық оттегінің белсенді түрлерінің жалғыз көзі деу қате.
Түзілу жылдамдығы тыныс алу субстратына, тасымалдаушылардың тотықсыздануына, протондық қозғаушы күшке және электрон ағынының бағытына байланысты. Электрондардың кері тасымалында тотықсызданған убихинон қоры электрондарды I кешенге бағыттайды. Бұл маңызды супероксид түзу режимі, бірақ әр митохондрияның тұрақты күйі емес. Оқшауланған жүйедегі оттегі «ағып кетуінің» үлесін барлық тіндерге көшіруге болмайды. I және III кешендердің радикалды шығару топологиясы да бірдей емес: матрикс пен мембранааралық кеңістікке қолжетімділігі өзгеше.
O2∙− заряды оның липидтік қосқабаттан еркін өтуін шектейді. Протондалған гидропероксил радикалы HO2∙ басқа қасиетке ие, бірақ матрикстің сілтілі pH жағдайында үлесі аз. Бұл көптеген реакцияның жергілікті болуын білдіреді, митохондрияның толық герметикалығын емес. Ал H2O2 компартменттер арасында сигнал тасымалдай алады; алмасу жылдамдығы мембраналық жолдар мен жою жүйелеріне тәуелді.
Эволюциялық сабақтастық және үш изофермент
Биосферадағы оттегінің таралуы жанама реакцияларды шектейтін жүйелерді іріктеуге күшті қысым туғызды. Супероксиддисмутазалар әртүрлі металл пайдаланып, әртүрлі құрылымдық отбасыларға жатады. Mn/Fe-SOD эволюциялық туыс; Cu/Zn-SOD белсенді орталығының құрылысы басқа. Митохондриялық MnSOD митохондрияның бактериялық шығу тегімен және ақуыз кодтайтын ақпараттың едәуір бөлігінің ядроға кейін ауысуымен үйлеседі. Функциялық сабақтастықты түсіндіру үшін нақты күн немесе бір қазіргі бактериялық ата-тек тобы қажет емес.
Адамда үш SOD жұмысты кеңістікте бөледі. SOD1 көбіне жасуша ішінде, цитозольде және мембранааралық кеңістіктің бір бөлігінде әрекет етеді; SOD2 матрикске бағытталады; SOD3 секреторлық жолмен өтіп, жасушадан тыс құрылымдармен байланысады. Үшеуі бір жиынтық реакцияны катализдейді, бірақ әртүрлі супероксид ағынымен кездеседі. Оларды өзара алмастыруға немесе қандағы белсенділігін бір диагностикалық көрсеткішке теңестіруге болмайды.
Қасиет
SOD1
SOD2
SOD3
Негізгі атау
Cu/Zn-SOD
MnSOD
Жасушадан тыс Cu/Zn-SOD
Адам геномындағы локус
21q22.11
6q25.3
4p15.2
Әдеттегі олигомер
Димер
Тетрамер
Гликозилденген суббірліктер тетрамері
Белсенді орталық металы
Мыс; мырыш құрылымды қолдайды
Марганец
Мыс; мырыш құрылымды қолдайды
Негізгі компартмент
Цитозоль және басқа жасушалық аймақтар
Митохондрия матриксі
Жасушадан тыс орта мен матрикс
Ақуыздың бағытталуы
Жасушаішілік таралу және жетілу
N-ұштық митохондриялық сигнал
Секреторлық сигнал және байланысу домені
Генетикалық модель мағынасы
Тапшылық пен уытты мутация әсерлері әртүрлі
Тышқанда толық жойылу ерте ауыр ауру туғызады
Әсер тін мен зақым моделіне тәуелді
Отбасылық бүйірлік амиотрофиялық склероздағы SOD1 мутациясын қалыпты антиоксидант реакцияның жоғалуымен ғана түсіндіруге болмайды: ақуыздың жаңа уытты қасиеттері маңызды. SOD1 немесе SOD3 тапшылығы бар кейбір модельдің тірі қалуы барлық ағзасының қалыпты жұмысын не ферменттердің қажетсіздігін білдірмейді. Салыстыру матрикстің ерекше жүктемесін және зерттелген модельдердегі SOD2 қажеттігін көрсетеді, бірақ барлық эукариот үшін әмбебап иерархия құрмайды.
Ядролық геннен марганецті белсенді орталыққа дейін
Синтез, импорт және жетілу
SOD2 гені ядролық геномда орналасқан, ақуыз цитозольдік рибосомаларда синтезделеді. Адамның негізгі ізашары N-ұштық бағыттау тізбегімен бірге 222 аминқышқылдан тұрады. 24 қалдықты лидер кесілген соң жетілген тізбек 198 аминқышқыл болады. Құрылымдық зерттеулер каталитикалық қалдықтарды көбіне жетілген ақуызда нөмірлейді; Ala16Val нөмірі ізашарға қатысты.
Митохондриялық бағыттау пептиді амфипатиялық спираль құра алады. Оң зарядталған беті мен гидрофоб қалдықтары тасымалдау жүйесінің тануын қолдайды, цитозольдік шаперондар ерте бүктелуге жол бермейді. TOM20/TOM22 рецепторлары мен TOM40 арнасы сыртқы мембранадан өткізеді; матрикс ақуызы үшін келесі жүйе — TIM23. Ішкі мембрана потенциалының электрлік бөлігі оң лидердің қозғалысына көмектеседі.
Импортқа матрикстегі PAM моторы мен mtHsp70-тің ATP-тәуелді жұмысы да қажет. Транслокациядан кейін MPP өңдеуші пептидаза бағыттау тізбегін кеседі; Hsp60/Hsp10 және басқа шаперондар жетілуді қолдайды. Соңында марганец қосылып, каталитикалық олигомер түзіледі. мРНҚ концентрациясы, цитозольдегі ізашар саны және матрикстегі белсенді SOD2 — байланысқан, бірақ бірдей емес шамалар.
Стресс әр деңгейге әсер етеді. Транскрипциялық реттелуде GC-ге бай промотор, Sp1/AP-2, генішілік реттеуші аймақтар, NF-κB және C/EBP жауаптары зерттеледі. PGC-1α/FoxO3a метаболикалық бағдарламалары қорғанысты митохондрия күйімен байланыстырады. Әр фактордың рөлі жасуша мен стимулға тәуелді; Nrf2 не FoxO3a болуы барлық тінде SOD2 тікелей бірдей реттелетінін дәлелдемейді.
Тетрамер, түйісу беті және құрылымдық түсіндіру
Жетілген адам MnSOD ақуызы шамамен 88 кДа гомотетрамер ретінде сипатталады. Әр мономерде негізінен спиральды N-ұштық аймақ пен C-ұштық α/β-домен бар, каталитикалық қалта араларында орналасады. «Димерлер димерін» суббірлік байланыстары, соның ішінде спираль шоқтары ұстайды. Түйісу бетінің тұрақтылығы белсенділікке әсер етеді, әсіресе температура мен ақуыз күйі өзгергенде.
PDB 1VAR — Ile58Thr бар адам MnSOD нұсқасы, өзгермеген ферменттің әмбебап моделі емес. Borgstahl әріптестері оны тетрамер түйісуінің тұрақсыздануымен және белсенділіктің төмендеуімен байланыстырды. Треониннің полярлы бүйір тізбегі изолейцин орнындағы ортаны өзгертеді. Бірақ барлық кең таралған SOD2 нұсқасы тетрамерді ыдырататыны шықпайды. Ala16Val кесілетін бағыттау пептидінде орналасып, басқа механизмге қатысты.
Кристаллография белгілі эксперимент жағдайындағы геометрияны береді. Атомаралық қашықтықтар, еріткіш орны, металл тотығу дәрежесі және сутектік желі құрылым мен әдіске тәуелді. Бір PDB координаттары барлық каталитикалық сатының өзгермейтін суреті емес. Негізгі сақталған қағида: ақуыз ортасы марганецке қайтымды электрон тасымалына лайық геометрия мен протондық байланыстар береді.
Бірінші және екінші координациялық сфералар
Жетілген адам MnSOD орталығында марганецті His26, His74, Asp159 және His163 үйлестіреді, қосымша орында еріткіш молекуласы тұрады. Геометрия көбіне бұрмаланған тригональды бипирамида деп сипатталады. Ақуыз лигандтары мен су немесе гидроксид бірінші сфераны, Gln143, Tyr34 және көрші қалдықтар екінші сфера мен сутектік желіні құрайды. Бұл нөмірлеу жетілген тізбекке қатысты.
Gln143 және Tyr34 протондық желіні ұйымдастырады, Phe77 мен Trp161 қалта ортасын қалыптастырады. Қалдықты ауыстыру не химиялық өзгерту металл орнында қалғанның өзінде каталитикалық белсенділікті өзгертеді. Орталық судағы бос Mn ионы сияқты емес: геометрия, еріткіштің қышқыл-негіздік қасиеті және екінші сфера бірге әрекеттесуді реттейді. «Металл және қаңқа» көрінісіне протон қозғалысы мен сутектік байланыстардың қайта құрылуы қосылады.
Марганец Mn3+ пен Mn2+ арасында ауысады, электрондық конфигурациялары d4 және d5. Жоғары спинді Mn3+ геометрияны электрондық күйге сезімтал етеді; бұл Ян—Теллер әсерімен талқыланады. Бірақ октаэдр өрісінің t2g/eg белгілерін бес координациялық орталыққа ойланбай көшіруге болмайды. «Энтатикалық күй» ақуыздың металды функцияға дайындауын білдіреді, әр сатының нөлдік энергия тосқауылын емес.
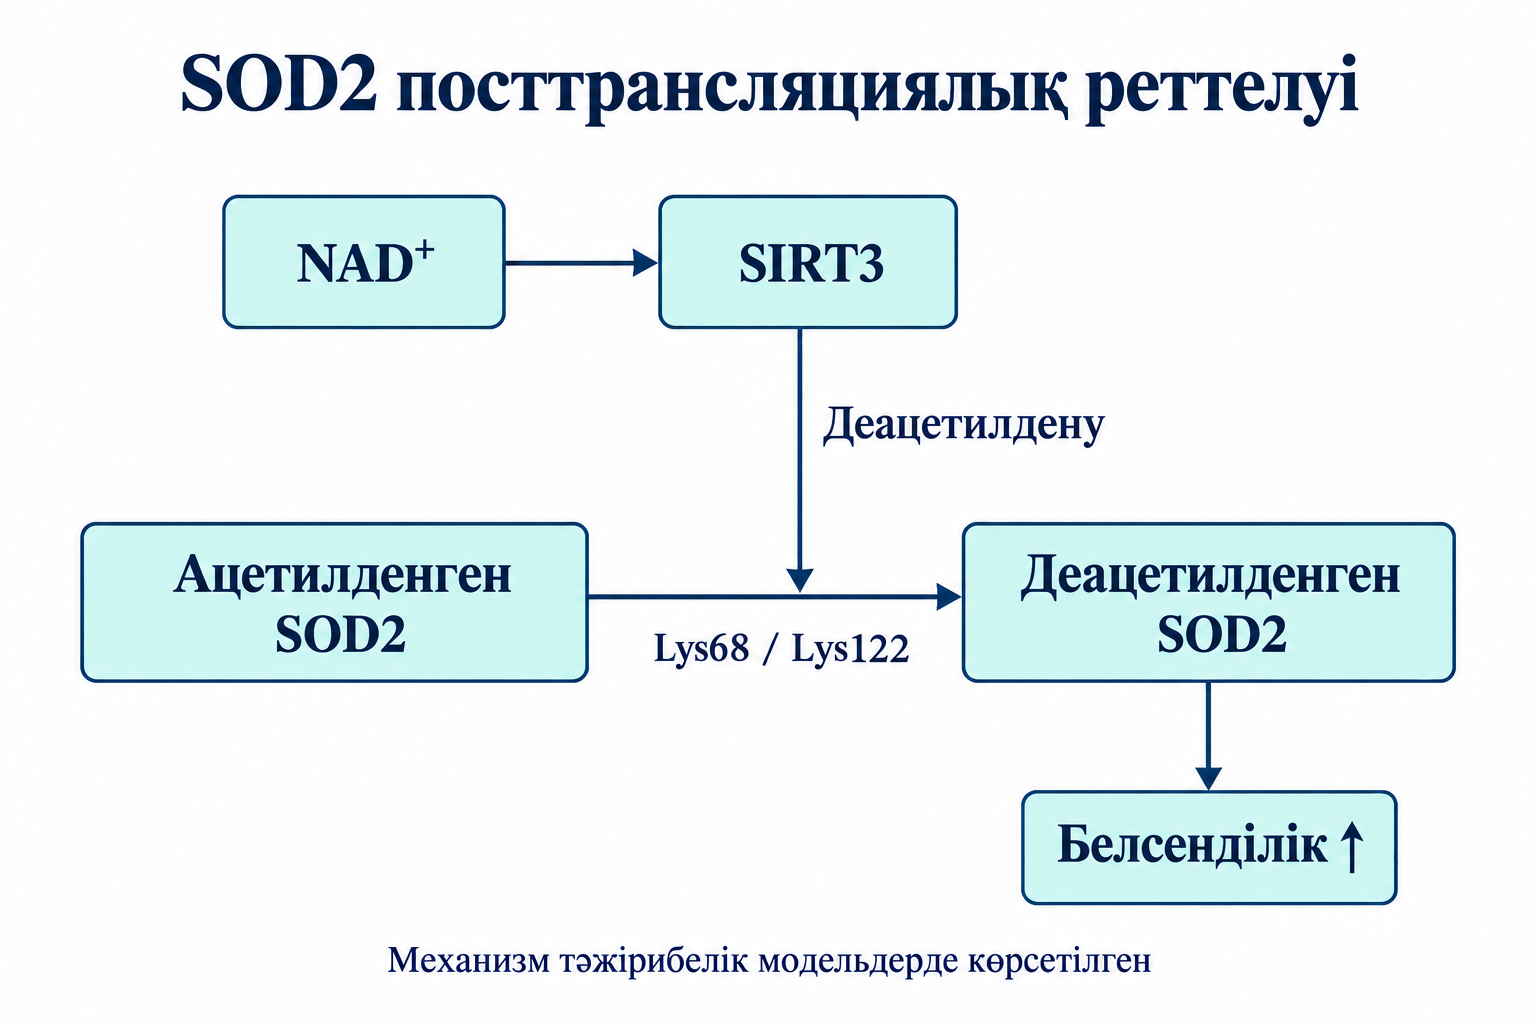
Оң зарядталған бет аниондық субстраттың қалтаға келуін жеңілдетеді. Бақыланған жылдамдықты электростатикалық бағыттау, диффузия және химиялық айналу бірге анықтайды. Lys68 немесе Lys122 реттелуі барлық беткі лизин бір «өткізгіш» құрайтынын дәлелдемейді. Зарядтан бөлек құрылымдық және функциялық тәжірибелер керек.
SOD2 не істейді: дисмутация және пероксидтің кейінгі жойылуы
Бір циклдегі екі электрон тасымалы
Дисмутация бір супероксид молекуласының тотығуын екіншісінің тотықсыздануымен біріктіреді. Mn электрон қабылдап, кейін беріп, бастапқы күйіне қайтады. Ақуыз орталығын E−Mn деп белгілесек, жарты реакциялар:
Электрон, атом және заряд теңгерілген, бірақ барлық аралық кешен көрсетілмейді. Нақты орталықта субстрат байланысуы, үйлестірілген еріткіш орны, протон тасымалы және сутектік желінің қайта құрылуы байланысқан. Аква және гидроксид формаларын жазғанда протондарды қосымша есептеу қажет. Су мен гидроксид атауын жай алмастыру теңестірілген механизм бермейді.
Редокс-потенциал циклдің екі жартысына да мүмкіндік беруі тиіс. Тиімділік марганецтің ең жоғары тотықсыздандыру күшіне тең емес: электронды оңай қабылдап, келесі субстратқа нашар беретін орталық каталитикалық жұмысын тоқтатады. Ақуыз потенциалды, қышқыл-негіздік қасиеттерді және кинетиканы баптайды. Сандық потенциал барлық MnSOD үшін тұрақты емес, өлшеу жағдайы мен фермент күйіне тәуелді.
Жылдам реакция шексіз өткізу қабілетін білдірмейді
Белсенді ферменттің супероксидпен реакциясы диффузиялық шекке жақын 109M−1s−1 шамасындағы бимолекулалық тұрақтыларға ие. Бұл екінші ретті k, s−1 өлшеміндегі айналым саны kcat емес. Екі жартының, pH аралықтарының және нұсқалардың жылдамдығы өзгеше болуы мүмкін. Жағдайсыз жалғыз сан айырманы жасырады.
Жоғары жылдамдық шағын SOD2 қорының стационарлық супероксидті тиімді шектеуін түсіндіреді. Ағын фермент концентрациясына, металл қосылуына, белсенді орталық үлесіне және радикал генерациясына да тәуелді. MnSOD үшін өнімдік тежелу және жоғары субстрат ағынында өнімділігі аз каталитикалық күйлер сипатталған. Пероксид не басқа өнім мүлде тежемейді деу тым кесімді.
Cu/Zn-SOD-пен салыстырғанда MnSOD-тың цианидке салыстырмалы төзімділігі кей талдауда изоферменттерді ажыратуға көмектеседі. Бұл барлық тежегішке абсолютті төзімділік емес: азид және басқа лиганд әсер етеді. Буфер, pH, супероксид генераторы және қосылыстың талдау жүйесінің өзіне әсері ескеріледі.
Пероксид — өнім, сигнал және ықтимал зақым көзі
SOD2 супероксидті тікелей суға айналдырмайды. Түзілген H2O2 басқа жүйелермен тотықсыздануы керек. Матрикстік пероксиредоксиндер, әсіресе PRDX3 пен PRDX5, және глутатионпероксидаза жүйесі маңызды. Үлесі тінге, концентрацияға және тотықсыздандырғыш серіктестер күйіне тәуелді; «барлық митохондрияда 90%» саны әртүрлілікті сипаттамайды.
Глутатионредуктаза GSSG-ті NADPH көмегімен қалпына келтіреді. Пероксиредоксиндер электрондарды тиоредоксин-2 және тиоредоксинредуктаза-2 арқылы алады, олар да NADPH-пен байланысты. Тотықсыздандырғыш эквиваленттер SOD2 мөлшері сияқты маңызды. Матрикстік IDH2 және никотинамид нуклеотид трансгидрогеназасы NNT NADPH қорын қолдайды; NNT бағыты мен тиімділігі мембрана биоэнергетикасына тәуелді.
Селен және селенопротеиндер SOD2 марганец орталығына емес, кейінгі пероксид алмасуына жатады. Каталаза негізінен пероксисомамен байланысты; жалпы лизаттағы жоғары белсенділік матрикстегі пероксидтің тиімді жойылуын дәлелдемейді. H2O2 түзілуі, тасымалы мен тотықсыздануы кеңістікте үйлесуі керек.
Орташа пероксид ағыны сезімтал цистеиндер мен ақуыздық тізбектер арқылы редокс-сигналға қатысады. Қалпына келтіру қабілеті асқанда ол, соның ішінде қолжетімді темірмен реакциялар арқылы, зақымға әкеледі. SOD2 арттыру супероксид стрессін төмендетіп, пероксид сигналын өзгерте алады. Сондықтан «көбірек антиоксидант фермент» әр жасушада бірдей нәтиже бермейді.
Азот оксидімен бәсеке және зақымның күшеюі
Бір радикал, екі жылдам жол
Супероксид азот оксидімен әрекеттесіп, пероксинитрит түзеді:
O2∙−+∙NO→ONOO−
Бұл реакция да өте жылдам. Тұрақтысын дисмутациямен салыстыру басым жолды өздігінен анықтамайды: жергілікті NO және белсенді SOD2 концентрациясы керек. Жеңілдетілген жуықтауда жылдамдық қатынасы:
vSOD2vNO≈kSOD2[SOD2]activekNO[NO]
Бұл пациентке дайын есеп емес, кинетикалық бәсеке көрінісі. Диффузияны, радикалдың динамикалық генерациясын және барлық қосалқы реакцияны қамтымайды. Алайда белсенді SOD2 азаюы, NO көбеюі не кеңістіктегі жақындық жалпы фермент саны өзгермесе де нитрлеуші жүктемені арттыратынын көрсетеді.
NO eNOS, nNOS немесе iNOS қатысатын жасушалық көздерден келіп, митохондрияға диффузиялануы мүмкін. Реакцияны түсіндіру үшін әмбебап жеке «митохондриялық NO-синтаза» қажет емес: ұсынылған mtNOS сәйкестігі мен маңызы жағдайға тәуелді. Қабынуда NO мен супероксидтің жоғары түзілуі тыныс алуды, редокс-сигналдарды және зақымды қатар өзгертеді.
Пероксинитрит бір нитрлеуші өнімге тең емес
Пероксинитрит пероксинитритті қышқылмен қышқыл-негіздік тепе-теңдікте болады және тиолдармен, металл орталықтарымен тікелей реакцияға түседі. Көмірқышқыл газымен аралық қосылыс түзіп, одан карбонат пен азот диоксиді радикалдары пайда болуы мүмкін. Бұл жолдар биологиялық ортадағы ақуыз тотығуы мен нитрленуін түсіндіреді. Өнім шығымы ортаға тәуелді және бүкіл пероксинитриттің бір радикал жұбына толық айналуына тең емес.
MnSOD белсенді орталығына жақын Tyr34 нитрленуі каталитикалық белсенділікті төмендетеді. Ықтимал оң кері байланыс туындайды: аз белсенділік супероксид жиналуын және NO-мен реакциясын арттырады, нитрленген зақым ферментті әрі әлсіретеді. Бұл белгілі модельдерде зерттелген механизм, әр тінде бірдей қайтымсыз күйреудің дәлелі емес.
3-Нитротирозин анықталуы нитрленген өзгерісті білдіреді, бірақ жалғыз көзді анықтамайды. Басқа, соның ішінде пероксидазаға тәуелді жолдар бар. Плазмадағы 3-нитротирозин SOD2 тапшылығының патогномониялық маркері немесе матрикстегі пероксинитриттің тікелей өлшемі емес.
Темір-күкірт кластерлері және жасуша өлімінің түрлері
Супероксид пен басқа тотықтырғыштар сезімтал темір-күкірт орталықтарын зақымдайды. Аконитазада жұмыс істейтін кластердің бұзылуы белсенділіктің азаюымен және цитрат айналуының өзгеруімен байланысты. Босаған темір лабильді қорды көбейтуі мүмкін. Пероксид болғанда Фентон реакциясына жағдай жасалады:
Fe2++H2O2→Fe3++OH−+∙OH
Салдар энергия алмасуына, митохондриялық ДНҚ-ға, ақуыздар мен мембраналық липидтерге таралады. Кардиолипин және тыныс алу кешендерінің зақымы электрон тасымалын өзгертіп, радикал генерациясын күшейтеді. «Пероксинитрит—барлық кластердің қирауы—міндетті өлім» деген әмбебап стехиометриялық тізбек бәсекені, жөнделуді және бейімделуді елемейді.
Өткізгіштік ауысу саңылауының ашылуын, цитохром c шығуын және каспазалық апоптозды ферроптоздан ажырату керек. Ферроптозда темірге тәуелді липид пероксидтері жиналып, GPX4 кіретін тотықсыздандыру жүйелері жеткіліксіз болады. Митохондрия өзгерісі мен SOD2 белгілі модельдегі сезімталдыққа әсер етеді, бірақ SOD2 төмендігі өлім түрін өзі анықтамайды. Себептілік арнайы өлшеу мен араласуды талап етеді.
Ақуыз мөлшері өзгермей белсенділік өзгереді
Ацетилдену және NAD⁺–SIRT3 байланысы
SOD2 транскрипциясы ықтимал синтезді, импорт пен құралу матрикстегі қорды, посттрансляциялық өзгерістер функциялық күйді анықтайды. Иммуноблоттағы SOD2 жолағы бірдей болуы бірдей каталитикалық белсенділікке кепіл емес. Лизин ацетилденуі бүйір тізбектің заряды мен байланысын өзгертеді; әсері қалдық орнына және жасушалық жағдайға тәуелді.
Tao әріптестері эволюциялық сақталған Lys122-ні, Chen тобы Lys68 арқылы реттелуді зерттеді. Сол жүйелерде SIRT3 MnSOD-ты деацетилдеп, белсенділігін арттырған. Нәтижелер митохондриялық деацетилаза мен антиоксидант қорғанысын байланыстырады, бірақ әр ацетилденген қалдық бірдей тежейді не осы екі орын барлық реттелуді қамтиды дегенді білдірмейді.
SIRT3 NAD⁺-ті косубстрат ретінде пайдаланады. Жиынтық схема ацетилденген ақуыз бен NAD⁺-тен деацетилденген ақуыз, никотинамид және O-ацетил-ADP-рибоза түзеді. NAD⁺ алмасуы, ацетил-CoA қолжетімділігі, матрикстің ферментсіз ацетилденуі мен SIRT3 белсенділігі тепе-теңдікке әсер етеді. Деацетилазаға қажет NAD⁺ глутатион мен тиоредоксинді қалпына келтіретін NADPH-тен бөлек.
B3 дәрумені және никотинамид кофакторларының алмасуы осы байланысты түсіндіреді, бірақ B3-тің кез келген түрінің SOD2 арқылы емдік әсерін дәлелдемейді. Қанда не тінде жалпы NAD⁺ жоғарылауы матрикс қорын, SIRT3-ті және клиникалық нәтижені бірдей өзгертпейді. Биохимиялық алғышарт пен емдік қорытынды арасына тікелей өлшемдер және бақыланатын зерттеулер керек.
Qiu тәжірибесінде калория шектеу SIRT3-тәуелді SOD2 белсенуі арқылы тотығу стрессін азайтты. Бұл энергия күйі мен қорғаныстың бейімделу байланысына маңызды дәлел. Бірақ жануарлық және жасушалық нәтижелер адамға әмбебап ашығу тәртібін бермейді және барлық әсер тек MnSOD арқылы өтетінін көрсетпейді.
Фосфорлану, тотығу және бейімделу жағдайы
Candas тобы радиациялық стреске жасушалық бейімделуде Cyclin B1/CDK1 арқылы MnSOD фосфорлануын зерттеп, Ser106 орнын анықтады. Бұл қорғаныстың жасуша циклімен және зақым жауабымен байланысын көрсетеді. Механизмді барлық физиологиялық күйге немесе дайын клиникалық радиопротекцияға көшіру тәжірибеден асып кетеді.
Тотығу және нитрлену өзгерістері ген экспрессиясы өскеннің өзінде функциялық қорды азайтады. Белсенді орталық жанындағы Tyr34 жоғарыда қаралды. Басқа редокс-өзгеріс, құралу және протеолиз нақты орын мен модельде бағалануы тиіс. Cys196 S-глутатиондануы мен Lon протеазасы арқылы тұрақты жолды тек тиолдың жалпы химиясынан әмбебап дәлелденген деп санауға болмайды.
Ақуыз ацетилденуі мен фосфорлануы — посттрансляциялық реттелу. «Эпигенетика» әдетте геном мен хроматиннің тұрақты реттелуіне қатысты; деңгейлерді араластыру түсінуді қиындатады. Олар байланысқанымен, SOD2 ацетилденуін өлшеу оның генінің эпигенетикалық күйін талдауға тең емес.
Деңгей
Не өзгереді
Зерттеу тәсілі
Түсіндіру шегі
Транскрипция
SOD2 мРНҚ
Сандық ПТР, транскриптомика
мРНҚ белсенді металл орталықты өлшемейді
Импорт және құралу
Матрикс орны, жетілген форма, олигомер
Фракциялау, ізашар талдауы, құрылымдық әдістер
Қоспа мен бөлу жағдайы әсер етеді
Металл қосылуы
Орталықтағы Mn толуы
Элементтік, спектроскопиялық талдау
Тіндегі жалпы Mn SOD2 ішіндегі Mn емес
Ацетилдену
Lys68, Lys122 және басқа орындар
Масс-спектрометрия, арнайы антиденелер, мутагенез
Мағынасы орын мен модельге тәуелді
Фосфорлану
Зерттелген модельдегі Ser106
Фосфосайт талдауы, киназа жолына араласу
Жасушалық адаптация клиникалық тиімділік емес
Нитрленген зақым
Соның ішінде Tyr34
Өзгеріс пен белсенділік талдауы
Жалпы 3-нитротирозин SOD2-ге тән емес
rs4880 нұсқасы және SOD2 тапшылығының тәжірибелері
Ala16Val бағыттау тізбегін өзгертеді
Кең таралған rs4880 ізашар тізбегінде c.47C>T және p.Ala16Val деп аталады. Қалдық кейін кесілетін митохондриялық бағыттау пептидінде орналасады. Болжанған әсер негізінен конформация мен импортқа қатысты, жетілген ферменттің Mn лиганды тікелей ауыспайды. Осылайша ол тетрамер түйісуіне қатысты Ile58Thr құрылымдық нұсқасынан ерекшеленеді.
Shimoda-Matsubayashi бағыттау тізбегінің болжамды құрылымын салыстырды. Sutton адам MnSOD импортының егеуқұйрық бауыры митохондриясында жүруін зерттеді. Бұл Ala/Val айырмасының функциялық маңызын қолдайды, бірақ әр тасымалдаушының әр тініндегі импортты өлшемейді. 30–40% азаюды эксперимент жүйесін атамай пациенттің әмбебап қасиетіне айналдыруға болмайды.
Тиімді импорт дисмутация қабілетін арттыруы мүмкін, бірақ нәтиже кейінгі пероксид жойылуына тәуелді. Нұсқаны ортаға қарамай сөзсіз «пайдалы» не «зиянды» деп бөлуге болмайды. Ақуыз саны, қатар жүретін генетикалық нұсқалар, тамақтану, қабыну, тіндік экспрессия және әдіс ассоциацияны өзгертеді. Популяциялық жиілік үлгінің шығу тегіне тәуелді, бүкіл адамзатқа бір орташа сан емес.
rs4880-нің жүрек-қантамыр, метаболикалық, онкологиялық және нейродегенерациялық нәтижелермен байланысын мұқият салыстыру керек. Үлгі айырмасы, көптік тексеру және факторлар байланысы түсіндіруді күрделендіреді. Ассоциация себептілік емес және Mn, селен, NMN немесе антиоксидант дозасын анықтамайды. Механистикалық әдебиет Val/Val мен Ala/Ala ем тармақтарын растамайды; COVID-19 не спорттық нәтижені де импорт тәжірибесінен шығаруға болмайды.
Толық нокаут, гетерозиготалық және тін осалдығы
Li, Lebovitz және Melov тышқандардағы Sod2 тапшылығының ауыр салдарын — кардиомиопатия, неврологиялық бұзылыс және ерте өлімді — көрсетті. Ауырлығы мен уақыты модель және генетикалық негізге тәуелді. Бұл зерттелген ағзаларға жеткілікті матрикс қорғанысы қажет екенін көрсетеді, бірақ барлық эукариот үшін SOD2 жоқтығының бірдей өлімді екенін анықтамайды.
Sod2(+/−) гетерозиготалы тышқандар толық жоғалтпай созылмалы жартылай азаюды зерттеуге мүмкіндік береді. Kokoszka жасқа байланысты митохондриялық дисфункция мен апоптоз артуын байқады. Алайда Van Remmen 2003 жұмысында ДНҚ зақымы мен қатерлі ісік жиілігі артқанымен, қартаю жеделдемеген. Белгілі зақым маркерінің өсуі қысқа өмірге немесе барлық жас үдерісінің міндетті жеделдеуіне тең емес.
Тіндік модельдер мен артық экспрессия нәтижесі міндетке тәуелді. Кейбір ошақты ми ишемиясы моделінде көп MnSOD қорғаған, ал жартылай тапшылық жүректің ишемиядан кейін жиырылуын қалпына келтіруді нашарлатқан. Радикал генерациясы, пероксидаза күйі, уақыт және араласу орны қорытындының таралуын анықтайды. Паракват сияқты уытты зақым модельдері радикал көзінің қалыпты тыныс алудан бөлек қосылыстың редокс-цикліне тәуелді болатынын көрсетеді.
Тәжірибе
Нені тексереді
Не автоматты түрде шықпайды
Толық Sod2 нокауты
Сол модельде даму мен тінге қажеттілік
Барлық түр мен генетикалық негіздегі бір фенотип
Гетерозиготалы нокаут
Созылмалы жартылай белсенділік азаюы
Міндетті жедел қартаю не қысқа өмір
Тінге тән араласу
Жергілікті себептік қатысу
Әр ағзадағы бірдей рөл
Артық экспрессия
Белгілі жүктемедегі қорғаныс
SOD2-ні шексіз арттыру пайдасы
Бағыттау пептидін өзгерту
Ізашар құрылымының импортқа әсері
Бір генотиптен дайын ем сызбасы
SIRT3 не өзгеру орнына араласу
Реттелу мен белсенділік байланысы
Кез келген «SIRT3 активаторының» клиникалық тиімділігі
Марганец, метаболикалық бейімделу және SOD миметиктері
Қажетті кофактор және шамадан тыс әсер қаупі
Марганец SOD2 металл орталығына қажет, бірақ қажеттілікті бір фермент белсенділігімен ғана бағалауға болмайды. Ол басқа ферменттік жүйелерге де қатысады; сіңу, таралу және шығарылу гомеостазды сақтайды. DMT1, ZIP8/SLC39A8 және ZIP14/SLC39A14 Mn алмасуына қатысты тасымалдау механизмдері, ішек, қан және тінде рөлдері әртүрлі. Олар тағамнан SOD2-ге дейін бір міндетті дәйекті «құбыр» құрмайды.
Митохондрияға жеткізу мен дұрыс металл қосылуын бөлек қарастыру керек. Кальций унипортері MCU белгілі жағдайда екі валентті катион тасымалына қатысады; бұл SOD2-ге барлық физиологиялық Mn тек MCU арқылы келеді деген дәлел емес. Ағзадағы жалпы концентрация, матрикс мөлшері және белсенді орталықтың толуы — бөлек шамалар. Артық элемент көбірек жұмыс істейтін ферментке кепіл емес.
NIH анықтамасында ересектерге барабар Mn тұтынуы ерлерге 2,3 мг/тәулік, әйелдерге 1,8 мг; жүктілікте 2,0 мг, емізуде 2,6 мг. Бұл тамақтану мәндері, MnSOD көтеретін емдік дозалар емес. АҚШ ересектерінің жоғарғы рұқсатты деңгейі тағам мен қоспаларды қосқанда 11 мг/тәулік. Ол мақсатты қабылдау емес және шығарылу бұзылғанда не ерекше әсерде қауіпсіздікті кепілдемейді.
Адамда тапшылық сирек, ал артық жүктеме нейроуыттылық пен манганизм туғызады. Кәсіби ингаляциялық әсер, кей парентералдық тамақтану жағдайы және өт арқылы шығаруды шектейтін ауруларға көңіл қажет. Темір күйі Mn алмасуына әсер етеді, бірақ ферритин арқылы SOD2 кофакторын есептеуге болмайды. Қосымша Mn клиникалық негіз, барлық көзді және қауіпті бағалау талап етеді; жалғыз rs4880 жеткіліксіз.
NAD⁺ ізашарлары және өсімдік реттеушілері
NR және NMN NAD⁺ ізашарлары ретінде зерттеледі. SIRT3-пен биохимиялық байланысы орынды, бірақ «қабылдау—матрикстік NAD⁺—SOD2 деацетилденуі—аз зақым—клиникалық пайда» тізбегінің әр өтпесі бөлек тексеріледі. SIRT3 және калория шектеу еңбектері «SOD2 емдеуге» әмбебап NMN 250–500 мг не NR 300–600 мг сызбасын сынамайды. Бұл дозаларды дайын тағайындау ретінде қалдыру гипотезаны клиникалық ұсынымға ауыстырады.
Сульфорафан, ресвератрол, птеростильбен және астаксантин редокс-сигнал, Nrf2, SIRT1/PGC-1α және қорғаныс ақуыздарының бейімделу экспрессиясында зерттеледі. SOD2 өзгерісі бір нәтиже болуы мүмкін, бірақ бұл жолдар тек MnSOD-қа тән емес. Доза, биожетімділік, тін, тәжірибе жүктемесі мен ұзақтығы маңызды. Схемадағы зат атауы оның қоспасының нақты адамға емдік артықшылығын дәлелдемейді.
Метформин де энергия алмасуы мен сигналдық жолдарға әсер етеді, SOD2-ні тікелей толықтырмайды. Клиникалық қолданылуы «митохондриялық антиоксидантты күшейту» мақсаты емес, көрсетілім мен қарсы көрсетілім бойынша анықталады. Орташа физикалық жүктеме және энергия адаптациясы биогенез бен редокс-қорғанысты өзгертеді, әсері жаттығу күйі мен қарқынға тәуелді. Бейімделу маркерлері, фермент белсенділігі және денсаулық нәтижесі ажыратылады.
Миметик бүкіл SOD2 биологиясын қайталамайды
Шағын молекулалы SOD миметиктері редокс-активті орталықпен каталитикалық дисмутацияны қайталауға ұмтылады. Mn порфириндері, Mn-сален EUK-8/EUK-134 және басқа металл кешендер зерттеледі. MnTE-2-PyP және MnTBAP құрамында Mn болғанымен өзара алмастырылмайды: координация, редокс-потенциал, заряд, тиімділік өзгеше. Кей қосылыстың SOD-тәрізді белсенділігі тазалық пен әдісті бағалауды қажет етеді.
Олар супероксидпен ғана емес, пероксинитрит, пероксид және жасушалық тотықсыздандырғыштармен де әрекеттеседі. Липофильдік пен заряд таралуды анықтайды, митохондрияда жиналу мембрана потенциалына тәуелді болуы мүмкін. Пробиркадағы белсенділік матрикске жеткізуді немесе терапиялық индексті орнатпайды. Редокс-активті нитроксид темпол да ақуыздық MnSOD немесе Mn порфириніне тең емес.
Калмангафодипир, PledOx, механизм мен клиникалық нәтиже айырмасын көрсетеді. Үміт берген II фазадан кейін колоректалдық обырдың оксалиплатин химиотерапиясында рандомизацияланған III фазалы POLAR-A және POLAR-M өтті. Қайталап енгізу кезіндегі аса сезімталдық салдарынан ерте тоқтатылды. Біріктірілген талдауда тоғыз айдағы орташа не ауыр нейропатия 5 мкмоль/кг тобында плацебодан жиі болды: 54,3% және 40,3%, салыстырмалы қауіп 1,37. Бастапқы нәтиже күтілген профилактикалық пайданы растамады. Сондықтан PledOx II және III фазаларды нейропатияның алдын алуда сәтті өтті деу қате.
Тәсіл
Биологиялық мақсат
Ашық сұрақ
Расталған Mn алмасу бұзылысын түзету
Шынайы тапшылықта кофактор
Белсенділік пен клиникалық нәтиже уытсыз жақсара ма?
мРНҚ экспрессиясы, ақуыз концентрациясы, орны, өзгерістері және белсенділігі әртүрлі сұраққа жауап береді. Бақыланатын супероксид генерациясы мен изоферментті ажырату маңызды. Негізгі бақылау заттың радикал генераторын ғана басуын не бояғышқа тікелей әсерін жоққа шығарады. Митохондрия фракциясының тазалығы тексеріледі: цитозольдік SOD1 қоспасы матрикс қорғанысын қате түсіндіреді.
Флуоресцентті зондтар, соның ішінде митохондрияға бағытталған гидроэтидин туындылары, бір молекулаға абсолютті ерекше өлшеуіш емес. Сигналға тотығу өнімдері, жүктелу, таралу және потенциал әсер етеді. Өнімдерді бөлу, тәуелсіз әдіс және функциялық араласу дәлелді арттырады. Бақылаусыз жалпы флуоресценция өсуі супероксид көзін не SOD2 ақауын анықтамайды.
Қанның ICP-MS элементтік талдауы Mn әсерін тиісті жағдайда бағалайды, бірақ фермент орталығының толуын өлшемейді. Референс аралық үлгі, зертхана және әдіске тәуелді. Бастапқы мәтіндегі әмбебап 7–15 мкг/л не жалғыз уыттылық шегі SOD2 диагностикалық стандарты болмайды. Тамақтану, кәсіби әсер, бауыр арқылы шығару және симптом ескеріледі.
3-Нитротирозин, 8-OHdG, GSH/GSSG қатынасы және липид тотығу өнімдері зақым мен редокс-күйдің әртүрлі жағын сипаттайды. Ешқайсысы тек SOD2 немесе митохондрияға тән емес. Глутатионда преаналитика аса маңызды; малон диальдегидтің бейспецификалық әдістері липид пероксидтенуін асыра бағалауы мүмкін. Себептік түсінік жергілікті өлшем мен зерттелген жолға араласудың келісуін талап етеді.
rs4880 генотиптеу зерттеу дизайнында пайдалы, бірақ әдебиет әр шаршау не метаболикалық синдромда SOD2, GPX1, CAT және SIRT3 міндетті клиникалық скринингін бекітпейді. Бір генотип әрпінен селен, NAC, липосомалық глутатион және NAD⁺ донорларын әмбебап тағайындау дәлелденбеген. Дисмутация артқандағы пероксид стрессі маңызды ықтимал механизм, дайын «Ala/Ala = артық пероксид» диагнозы емес.
Ғылыми тәсіл нақты сұрақтан басталады: белсенді фермент аз ба, импорт бұзылған ба, металл орталық зақымдалған ба, әлде кейінгі пероксид тотықсыздануы шектелген бе? Осы гипотезаларды ажырататын өлшем таңдалып, корреляциямен шектелмей себептілік тексеріледі. Клиника ауруға, симптомға, экспозицияға және расталған әдіске сүйенеді; зерттеу маркері оны алмастырмайды.
Үйлескен қорғаныс жүйесі
SOD2 матрикс супероксидін шектеп, дисмутация, NO реакциясы және сезімтал орталық зақымы арасындағы ағынды өзгертеді. Жұмысы Mn, импорт, құралу және посттрансляциялық күйге тәуелді. Нәтижеге пероксид тотықсыздануы, NADPH, темір алмасуы және энергия да әсер етеді.
Функциялық тапшылық аз ақуызға, ал ақуыз артуы кепілді пайдаға тең емес. Нокаут, құрылымдық зерттеу, жасушалық реттелу және клиникалық сынақ бөлек сұрақтарға жауап береді. Оларды үйлестіріп, өзара алмастырмай пайдалану MnSOD механизмін дәлелсіз ем хаттамасына айналдырмай түсіндіреді.
Материал қалай дайындалды
Негізі — ұсынылған SOD2 ғылыми мәтіні, библиографиясы, механизмдері, салыстыру кестелері мен тәжірибелік модельдері. 2026 жылғы 8 қазандағы редакцияда даулы бөлшектер PubMed бастапқы жазбалары, RCSB құрылымдық дерегі, POLAR жарияланымы және NIH марганец анықтамасы бойынша нысаналы салыстырылды. Кинетикалық тұрақтының өлшемі, реакция балансы, қартаю моделі мен клиникалық қорытындының араласуы, 1VAR сипаттамасы және нақты библиографиялық қателер түзетілді. Cochemé және Murphy 2008 паракватты зерттеген: атау мен идентификатор нақтыланды, жұмыс кері электрон тасымалының жалпы әдебиетін алмастырмайды.
Бұл баяндау ғылыми шолуы және бастапқы мәтіннің редакциялық тексеруі, алдын ала тіркелген хаттамалы жүйелі іздеу немесе метаталдау емес. Қалған сілтемелерде берілген библиографиялық негіз сақталды; әр жұмыстың жаңа толық аудиті мәлімделмейді. Тәуелсіз клиникалық сынау, сыртқы рецензия немесе GRADE бағалауы жасалмады. Шектеулер мен теріс нәтижелер барлық тілдік нұсқада сақталған.
Жиі қойылатын сұрақтар
Митохондрияны қорғауға SOD2 арттыру жеткілікті ме?
Жоқ. Дисмутация H₂O₂ түзеді; нәтиже пероксидаза, глутатион мен тиоредоксин қалпына келуі, NADPH, темір және энергияға тәуелді. Ақуыз мөлшері белсенділікке тең емес.
rs4880 бойынша қоспа таңдауға бола ма?
Келтірілген зерттеулер емдік дозаны немесе Val/Val және Ala/Ala тармақтарын растамайды. Генотип клиникалық негізді, экспозиция бағасын және бақыланған деректі алмастырмайды.
Қосымша марганец MnSOD-ты күшейте ме?
Mn қажет кофактор, бірақ артық мөлшер дұрыс металл қосылуын кепілдемейді және нейроуытты болуы мүмкін. Тағамдық мәндер SOD2 емдік дозасы емес.
Барлық SOD миметиктерінің клиникалық пайдасы дәлелді ме?
Жоқ. Химиялық белсенділік жеткізу не адамға пайданы орнатпайды. POLAR калмангафодипирдің күтілген профилактикалық әсерін растамады, қайталап енгізуде аса сезімталдық болды.