
SIRT3: mitoxondrial deasetillanish va almashinuv
SIRT3 NAD⁺, oqsil asetillanishi, yog‘ kislotalari oksidlanishi va redoks himoyasini qanday bog‘laydi: tuzilish, nishonlar va odam davosiga ko‘chirish chegaralari.
SIRT3 NAD⁺, oqsil asetillanishi, yog‘ kislotalari oksidlanishi va redoks himoyasini qanday bog‘laydi: tuzilish, nishonlar va odam davosiga ko‘chirish chegaralari.
SIRT3 NAD⁺ mavjudligini mitoxondrial oqsillarning holati bilan bog‘laydi. U lizindan asetil guruhlarini olib tashlab, yog‘ kislotalari oksidlanishi, ketogenez, nafas olish va antioksidant tizimlarga ta’sir qiladi. Ammo keng tarqalgan asetillanish fermentlarning ommaviy o‘chishini anglatmaydi, geni o‘chirilgan sichqon fenotipi esa qo‘shimchani «mitoxondriyalarni qayta faollashtirish»ning isbotlangan vositasiga aylantirmaydi. SIRT3 ni tushunish uchun modifikatsiyaning kimyoviy imkoniyati, o‘zgargan molekulalar ulushi, aniq nishon va dalil darajasini birga ko‘rish kerak.
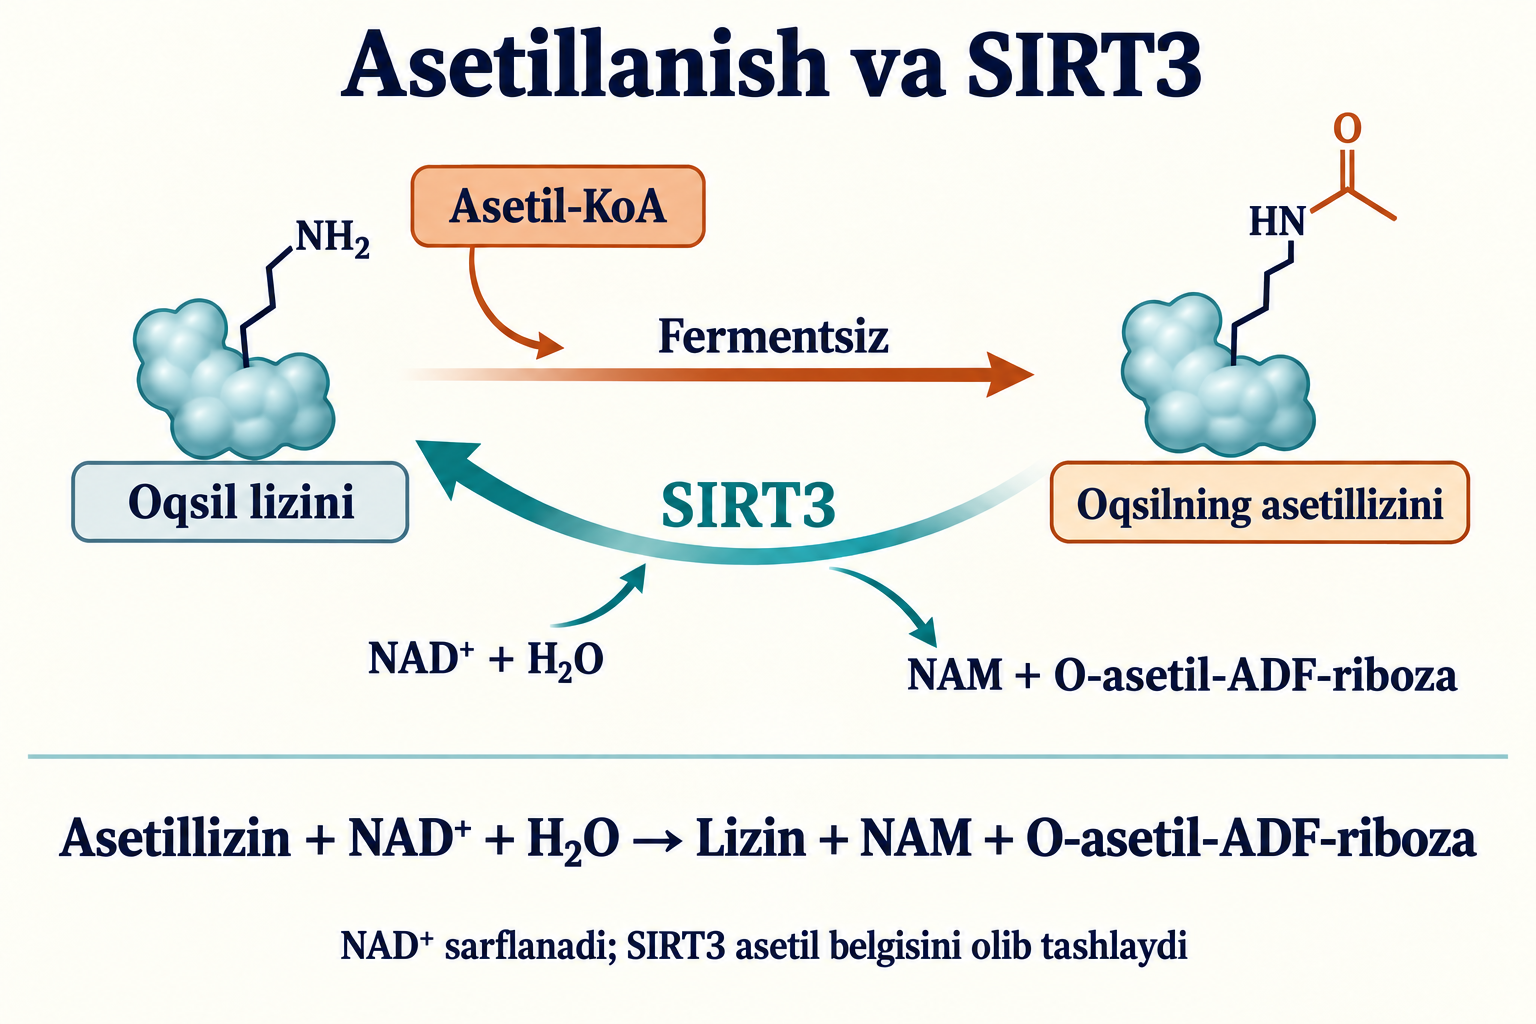
Nafas zanjiri protonlarni matriksdan chiqaradi, shuning uchun u odatda sitozolga qaraganda ishqoriyroq bo‘ladi. Piruvat va yog‘ kislotalari oksidlanganda bu yerda asetil-KoA ham hosil bo‘ladi. Lizinning protonlanmagan ε-amino guruhi asetil-KoA tioefiriga hujum qilishi mumkin:
Wagner va Payne matriks muhitini takrorlaydigan sharoitlarda oqsillarning fermentsiz asetillanishi va suksinillanishi doza hamda vaqtga bog‘liqligini ko‘rsatdi. Bu kimyoviy yo‘lni qo‘llab-quvvatlaydi, lekin tirik organizmdagi ayrim modifikatsiyalarning fermentativ boshqarilishini inkor etmaydi. pH, asetil-KoA va oqsil konsentratsiyalari to‘qima, ovqatlanish va usulga bog‘liq; bitta o‘zgarmas raqamlar to‘plami barcha mitoxondriyani tasvirlamaydi.
Mavjud amino guruhlari ulushi mahalliy pKₐ ga bog‘liq:
pKₐ taxminan 10,5 bo‘lgan erkin lizin uchun pH 8 da bu ulush qariyb 0,3%; molekulalarning aksariyati emas. Alohida qoldiqlarning muhiti pKₐ va reaksiyaga kirishish xususiyatini o‘zgartirishi mumkin. Makromolekulalar zichligi mavjudlik va o‘zaro ta’sirga ta’sir qiladi, ammo barcha reaksiyaning bir xil tezlashishini isbotlamaydi.
Asetillanish lizinning musbat zaryadini neytrallab, kofaktor, substrat yoki membrana bilan bog‘lanishni o‘zgartirishi mumkin. Biroq mass-spektrometriyada joyni aniqlash modifikatsiyalangan molekulalar ulushi yoki umumiy oqim o‘zgarishini avtomatik ochib bermaydi. Dastlabki proteomik ishlar ko‘plab mitoxondrial nishonlarni topgan; bu «oqsillarning 60–65% ida stexiometrik muhim belgilar» yoki «40–90% tormozlanish»ni universal tarzda belgilamaydi.
2015 yilda Weinert va hamkasblari sichqon jigarida stexiometriyani o‘lchab, mitoxondrial asetillanish joylarining ko‘pchiligida bandlik pastligini aniqladi. SIRT3 o‘z nishonlaridagi modifikatsiyani ayniqsa past darajaga tushirdi, ko‘plab shunday joylar esa ochlikda kam o‘zgardi. Bu ayrim funksional muhim qoldiqlarni boshqarish bilan birga shikastni tuzatish modelini qo‘llab-quvvatlaydi. «Asetilom falaji» juda qat’iy ta’rif: ta’sir yo‘nalishi va ko‘lamini har bir oqsil uchun aniqlash zarur.
Sutemizuvchilarning yetti sirtuini NAD⁺ ga bog‘liq kataliz tamoyilini bo‘lishadi, ammo substratlari va tarqalishi farqlanadi. SIRT1 va SIRT2 asosan mitoxondriyadan tashqarida ishlaydi, SIRT6 va SIRT7 yadro jarayonlarida qatnashadi. SIRT3 asosiy mitoxondrial deasetilaza; Sirt3 yo‘qolishi ko‘plab to‘qimada oqsillar giperasetillanishiga olib keladi. Bu SIRT4 va SIRT5 muhim emas yoki ularning funksiyalari mutlaqo kesishmaydi degani emas.
| Xususiyat | SIRT3 | SIRT4 | SIRT5 |
|---|---|---|---|
| Asosiy ixtisoslashuv | Lizinning asetil guruhlarini olib tashlash | Bir necha deasillanish reaksiyasi, jumladan lipoamidaza faolligi; ADF-ribozillanish orqali boshqarilish ham tasvirlangan | Desuksinillanish, demalonillanish va deglutarillanish |
| Nishon misollari | AceCS2, LCAD, IDH2, SOD2 | PDH kompleksining lipoillangan DLAT qismi | CPS1 va dikarboksilli asil guruhlari bor boshqa oqsillar |
| Modifikatsiya ahamiyati | Zaryad, katalitik kontaktlar va barqarorlik | Lipoamid kofaktorini olib tashlash PDH oqimini kamaytirishi mumkin | Manfiy zaryadli asil belgilarining o‘zgarishi |
| Taqqoslash chegarasi | Ta’sir joy va stexiometriyaga bog‘liq | Bitta tormozlovchi funksiya bilan cheklanmaydi | Kuchsiz deasetillanish faollik yo‘q degani emas |
Mathias va hamkasblari SIRT4 lipoamidaza faolligini, Du va hamkasblari esa SIRT5 ning suksinil va malonil guruhlariga afzalligini ko‘rsatdi. SIRT5 dagi Arg105 va Tyr102 shu guruhlarni tanishga yordam beradi; tirozinni oddiy musbat zaryadli qoldiq sifatida tasvirlash to‘g‘ri emas. Peptid va sharoit ko‘rsatilmagan «asetillangan lizin» uchun universal Kₘ qiymatlari mazmunli emas.
Odam SIRT3 geni 11p15.5 da joylashgan; ekzonlar va muqobil transkriptlarni tasvirlash muayyan annotatsiyani talab qiladi. To‘liq shakl 399 aminokislotadan iborat, massasi taxminan 44 kDa. N-uchidagi qism tashqi va ichki membrana import tizimlari taniydigan mitoxondrial signalni tutadi. Amfipatik yo‘naltiruvchi ketma-ketlik, TOM/TIM va matriks shaperonlari membrana potensiali hamda energiya bilan ta’minlangan importni talab qiluvchi yo‘lda qatnashadi.
Schwer ning 2002 yilgi ishi matriksda joylashuv, taxminan 28 kDa mahsulotgacha ishlov berilishi va MPP bilan ishlovdan keyingi faollashishni ko‘rsatdi; Arg99/Arg100 mutatsiyasi ishlov berilishini buzdi. Yetilgan mahsulot massasi, kesilish joyi, transkript va kristallangan katalitik konstrukt chegaralari — turli xususiyatlar. Shuning uchun har bir hujayrada yetilgan oqsilni «142–399 qoldiqlar» bilan tenglashtirish yoki barcha qisqa izoformani funksional teng deb e’lon qilish mumkin emas. Mitoxondriyadan tashqarida taklif qilingan oqsil havzalari ham, ayniqsa ortiqcha ekspressiyada, alohida dalilni talab qiladi.
Katalitik yadro katta Rossman-simon domen va kichikroq rux bog‘lovchi domenga ega. Strukturaviy Zn²⁺ sisteinlar bilan koordinatsiyalanib, oqsilning buklanishini saqlaydi; metall kofaktori sifatida gidrolizni katalizlamaydi. Asetillangan peptid va NAD⁺ domenlar orasida bog‘lanadi; moslashuvchan elementlar bog‘lanishda harakat qiladi. Katalitik gistidin proton ko‘chishida qatnashadi, lekin batafsil yo‘lni faqat statik tuzilishdan chiqarib bo‘lmaydi.
Haqiqiy PDB yozuvlari farq qiladi: 3GLS — 2,70 Å aniqlikdagi odam SIRT3; 4BV3 — EX-527 va NAD bilan kompleks, 2,00 Å; 4FVT asetillangan ACS peptidi va carba-NAD ni tutadi, 2,47 Å. Oxirgisi oddiy ADF-riboza bilan kompleks emas. Carba-NAD bog‘lanishni o‘rganish analogi, inhibitorli tuzilish esa to‘siqsiz katalitik aylanishni tasvirlamaydi.
Umumiy reaksiya asetil guruhini kofaktorning ADF-riboza qismiga ko‘chiradi:
NAD⁺ shunchaki NADH ga aylanmaydi, sarflanadi. Nikotinamid–riboza bog‘i uzilishi nikotinamidni chiqaradi; bog‘liq oraliq mahsulotlar deasetillangan oqsil va asosan 2′-O-asetil-ADF-riboza beradi, u 3′-izomerga o‘tishi mumkin. Alkilimidat va siklik oraliq mahsulotlar mexanizmni tavsiflashga yordam beradi, ammo sodda «oddiy qat’iy Sₙ2 reaksiya» muhokama qilinadigan dissotsiativ xususiyat va proton ko‘chishi ketma-ketligini qamramaydi. OAADPR metabolit va ehtimoliy signal ishtirokchisi sifatida o‘rganiladi; uning hosil bo‘lishi o‘z-o‘zidan muayyan tizimli ta’sirni belgilamaydi.
Kong va hamkasblari PGC-1α sichqon Sirt3 ekspressiyasini ERRα bog‘laydigan promotor elementi orqali oshirishini ko‘rsatdi. PGC-1α koaktivator, mustaqil DNK-bog‘lovchi omil emas. O‘rganilgan miotubalar va gepatotsitlarda ERRα kamayishi induksiyani susaytirdi, SIRT3 esa ROS va mitoxondrial biogenez o‘zgarishlarida qatnashdi. Bu ekspressiya korrelyatsiyasidan kuchliroq, ammo har bir odam promotorining bir xil arxitekturasini belgilamaydi.
AMPK, SIRT1 va PGC-1α energiya holatini moslashuv bilan bog‘laydi; PPARα lipid almashinuvini muvofiqlashtiradi. Fosforlanish, deasetillanish va yadro retseptorlari o‘zaro ta’siri to‘qima hamda stimulga bog‘liq. Shuning uchun aralashuvdan keyin SIRT3 ko‘payishi PPARα ning muayyan gen hududiga bevosita bog‘langanini isbotlashga teng emas. Ochlik, kaloriyani cheklash va mashqqa javob a’zo va vaqt bo‘yicha farq qiladi; oqsilning universal «uch-besh baravar» ko‘payishi yo‘q.
Reaksiya matriksdagi erkin mavjud NAD⁺, asetillangan substrat va nikotinamid konsentratsiyasiga bog‘liq. Peptid substrati o‘zgarmaganda taxminiy bog‘liqlikni shunday yozish mumkin:
Bu shartli model, ikki substratli reaksiyaning har bir bosqichi tavsifi emas. Kₘ peptid va usulga bog‘liq; NAD⁺/NADH nisbati kofaktorning mutlaq konsentratsiyasini almashtirmaydi. NADH ning in vitro ehtimoliy tormozlanishini asosiy fiziologik kalit deb atashdan oldin haqiqiy konsentratsiya va bog‘lanish bilan taqqoslash kerak.
2020 yilda Luongo va hamkasblari SLC25A51 butun NAD⁺ ni sutemizuvchilar mitoxondriyasiga tashishini ko‘rsatdi. Uning yo‘qolishi umumiy hujayraviy emas, mitoxondrial NAD⁺ ni kamaytirdi, nafas olishni buzdi va ajratilgan organellalarda yutilishni to‘xtatdi. Demak, ichki membrana NAD⁺ ni mutlaqo o‘tkazmaydi va ta’minot faqat NMNAT3 orqali bo‘ladi degan fikrlar eskirgan. Prekursor almashinuvi, transport va hujayraviy havzalarni alohida ko‘rish kerak.
Nikotinamid katalitik cho‘ntakka qaytib, asos almashinuvida qatnashishi mumkin: oraliq mahsulotdan NAD⁺ ni qayta hosil qilib, unumli reaksiyani sekinlashtiradi. Bu mahsulot bilan tormozlanish, faol markazdan uzoq klassik allosterik bog‘lanish bo‘lishi shart emas. IC₅₀ va Kᵢ bir-birini almashtirmaydi va sharoitga bog‘liq; o‘zgarmas «30–50 mkM» va bitta doimiy matriks oralig‘ini barcha to‘qimaga umumlashtirib bo‘lmaydi. NAMPT → NMN → NAD⁺ qayta foydalanish yo‘li NAM ni olib tashlash bilan birga kofaktorni to‘ldiradi. Uning CD38 va PARP orqali NAD⁺ sarflanishi bilan aloqasi kofaktor almashinuvini SIRT3 ning bevosita faollashuvidan ajratishga yordam beradi.
2010 yilda Hirschey va hamkasblari Sirt3 geni o‘chirilgan sichqonlarda LCAD Lys42 giperasetillanishi, ochlikda yog‘ kislotalari oksidlanishi pasayishi va oraliq mahsulotlar to‘planishini tasvirladi. Lys318 va Lys322 ni Bharathi 2013 yilda alohida tekshirdi: rekombinant LCAD kimyoviy asetillanishi substrat bog‘lanishini yomonlashtirdi, SIRT3 esa faollikni qisman tikladi. Bu qoldiqlar FAD ni koordinatsiyalovchi elementlarga yaqin; mualliflar konformatsion mexanizmni taklif qildi. Barcha natijani ikki joy va bitta 2010 yilgi ishga nisbat berish noto‘g‘ri.
Och sichqonlarda ATP pastligi va sovuqqa chidamsizlik kuzatilgan, ammo raqamli ta’sirlarning barchasini bir xil to‘rt baravar ferment faollashuviga birlashtirib bo‘lmaydi. Turlar farqi ham muhim: odam LCAD si sichqon LCAD sining vazifasini energiyaga talabchan barcha a’zoda takrorlamaydi; odam uzun zanjirli oksidlanishida VLCAD ayniqsa muhim. VLCAD tadqiqoti SIRT3/SIRT5 ning katalitik joylar va kardiolipin bog‘lanishiga ta’sirini ko‘rsatdi. MCAD yoki VLCAD joylari ro‘yxatini tegishli oqsil ma’lumotisiz kengaytirish mumkin emas.
CPT1–CACT–CPT2 karnitin tashish tizimi uzun zanjirli asil guruhlarini matriksga yetkazadi. Kirish va keyingi oksidlanish mos kelmasligi asil-karnitinlar hamda lipid oraliq mahsulotlari to‘planishiga yo‘l ochadi. Bu lipotoksiklikni tushuntiradi, ammo SIRT3 tashish tizimining har bir qismini bevosita deasetillashini isbotlamaydi. DAG, seramidlar, PKC va insulin signallari bir necha yo‘lni o‘z ichiga oladi; IRS-1 Ser307 orqali Akt to‘liq o‘chadigan universal zanjir soddalashtirilgan va turga bog‘liq.
Mitoxondrial AceCS2 tarixiy nomi ACSS1 ga mos, zamonaviy ACSS2 esa asosan sitozolik/yadroviy fermentni bildiradi. 2006 yilda Schwer va Hallows asetil-KoA sintetazalarining asetillanishga bog‘liq boshqarilishini ko‘rsatdi. Lys642 odam mitoxondrial AceCS2 si uchun muhim: SIRT3 modifikatsiyani olib tashlab, ferment faolligini tiklaydi.
Asetat yoqilg‘i almashinuvini qo‘llab-quvvatlashi mumkin, ammo reaksiya energiya talab qiladi va uni universal «o‘ta samarali» oziq moddasiga aylantirmaydi. To‘qima konteksti, asetat mavjudligi va boshqa yo‘llar bitta kalitdan muhimroq.
HMGCS2 ketogenezning muhim bosqichida qatnashadi:
Shimazu va hamkasblari SIRT3 bo‘lmaganda Lys310/Lys447/Lys473 giperasetillanishini, ochlikdagi deasetillanishni va modifikatsiya olib tashlanganda yoki tegishli almashtirishlardan keyin faollik oshishini ko‘rsatdi. Geni o‘chirilgan sichqonlarda ochlikda β-gidroksibutirat pastroq bo‘lgan. Bu SIRT3 hissasini ko‘rsatadi, usiz ketogenez mutlaqo imkonsizligini emas. Keyingi reaksiyalar asetoasetat va β-gidroksibutirat hosil qiladi; jigar ishlab chiqarishi va boshqa to‘qimalar foydalanishi alohida jarayonlardir.
SDH suksinat oksidlanishini ubixinon qaytarilishi bilan bog‘laydi: SDHA FAD ni, SDHB Fe–S markazlarini tutadi, SDHC/SDHD esa membrana qismini beradi. II kompleksning o‘zi proton haydamaydi. Cimen va hamkasblari SDHA asetillanishi hamda faolligining SIRT3 ga bog‘liq o‘zgarishini ko‘rsatdi. Bu Lys179 orqali bitta universal mexanik yo‘l yoki Sirt3 yetishmaydigan har a’zoda onkogen suksinatning majburiy yig‘ilishini belgilamaydi. Suksinat o‘zgarishi α-ketoglutaratga bog‘liq dioksigenazalarga ta’sir qilishi mumkin, lekin to‘liq sababiy zanjir alohida tekshirilishi kerak.
IDH2 matriksdagi NADP⁺ ga bog‘liq ferment bo‘lib, NAD⁺ ga bog‘liq IDH3 dan farq qiladi:
Someya SIRT3, IDH2 faollashuvi, NADPH/GSH va kaloriyasi cheklangan sichqonlarda eshitish himoyasini bog‘ladi. Yu 2012 yilda aynan Lys413 ni tekshirdi: asetillizinni muayyan joyga kiritish rekombinant IDH2 faolligini keskin pasaytirdi, SIRT3 esa tikladi. Bu muayyan biokimyoviy natija, barcha mitoxondriyada NADPH universal uch baravar ko‘payishi emas. NADPH ning boshqa manbalariga NNT, malik-fermentlar va bog‘liq metabolik yo‘llar kiradi; NNT shunchaki «translokaza» emas, transgidrogenaza.
Glutamatdegidrogenaza GLUD1 glutamat, α-ketoglutarat va ammoniyni bog‘laydi:
Schlicker SIRT3 orqali GDH deasetillanishi va faollashuvini ko‘rsatdi. Anapleroz, aminokislotalar oksidlanishi va azot almashinuvi bog‘liq, lekin ajralgan ammoniy mochevina sikli substrati; CPS1 ning asosiy allosterik aktivatori N-asetilglutamatdir. Muayyan tadqiqotsiz SIRT3 Lys398 orqali GTP ning barcha tormozlanishini yo‘qotadi yoki har qanday ovqatlanish sharoitida SIRT4 uning ko‘zgudagi antagonisti bo‘lishi shart deb bo‘lmaydi.
2008 yilda Ahn Sirt3 geni o‘chirilgan sichqonlarning ayrim a’zolarida bazal ATP 50% dan ko‘proq pastligini, I kompleks qismlari asetillanishi ortganini va SIRT3 ning NDUFA9 bilan o‘zaro ta’sirini kuzatdi. Qo‘shilgan ferment kompleks faolligini oshira olgan. Bu faqat Lys370 sharnirni boshqarishi, barcha elektron sizishini yo‘qotishi yoki teskari elektron transporti, RET ni to‘sishini isbotlamaydi. Oqim yo‘nalishi CoQ qaytarilish holati, proton gradiyenti va mavjud substratga ham bog‘liq.
ATP-sintaza proton gradiyenti energiyasini ATP ga aylantiradi. Rotor va periferik tayanch birga ishlashi kerak; tarixiy ATP5O nomli OSCP hozir ko‘pincha ATP5PO deb belgilanadi. Vassilopoulos ning 2014 yilgi ishi F₁ oqsillaridagi SIRT3 ga bog‘liq asetil joylarini aniqladi va OSCP Lys139 ni oziqlanish hamda mashq stressiga bog‘lab tekshirdi. Majburiy «stator bo‘shashuvi» yoki ATP ishlab chiqarishning universal ikki baravar oshishi bu natijalardan tashqariga chiqadi.
2016 yilda Yang va hamkasblari SIRT3 ning bir qismi ATP-sintaza bilan bog‘lanishini ko‘rsatdi; matriks pH pasayishi va potensial yo‘qolishi uning ajralishi va matriks oqsillarining tez deasetillanishi bilan birga kechdi. ATP5O His135 pH ga bog‘liq mexanizm uchun muhim bo‘lgan. Bu barcha ferment doim membranaga bog‘langan degan da’vo emas, hujayraviy o‘zaro ta’sir tarmog‘i tadqiqoti.
RCR belgilangan holatlardagi nafas tezligini taqqoslaydi, P/O esa fosforlanishning kislorod almashinuvi bilan uyg‘unlashuvini baholaydi. Ikkalasi preparat, substrat, usul va holat ta’rifiga bog‘liq. «Me’yorda 6–10» va «SIRT3 yetishmovchiligida 2,5–3,5» o‘zgarmas qiymatlari universal diagnostik chegaralar emas. SIRT3 bioenergetikaga ta’sir qiladi, ammo proton sizishi yo‘qligiga kafolat bermaydi: boshqariladigan ajralish ham fiziologik vazifaga ega.
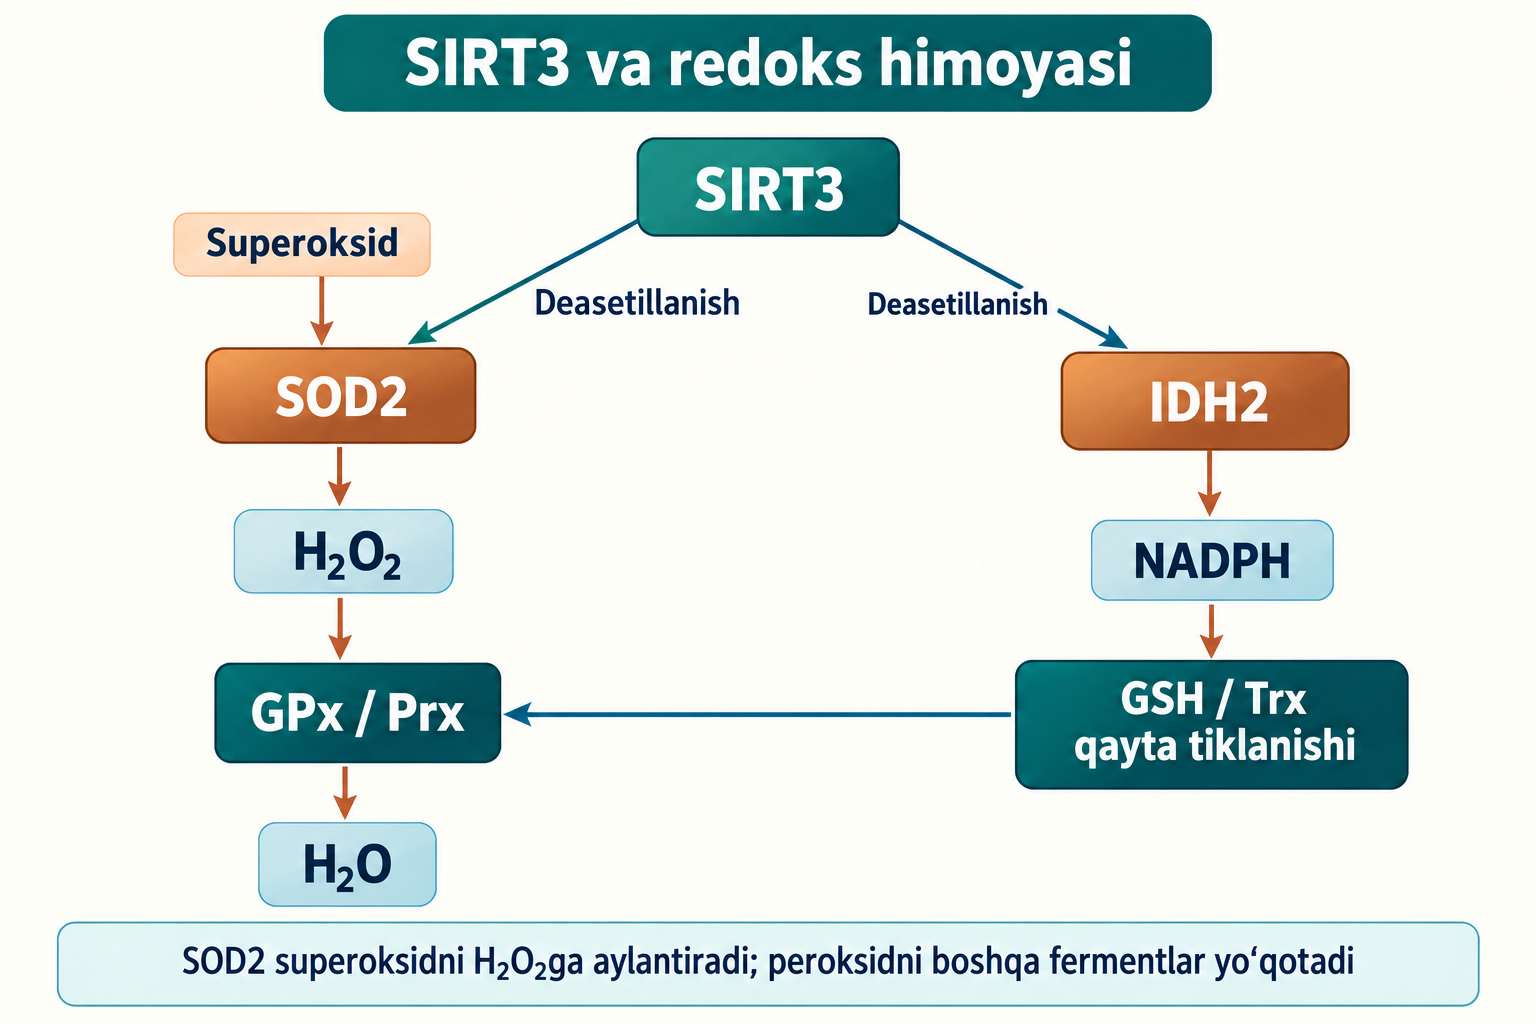
SOD2 Mn(III)/Mn(II) sikli orqali superoksidni H₂O₂ ga aylantiradi. Umumiy reaksiya:
Tao Lys122 ni, Chen Lys68 ni, Qiu esa kaloriyani cheklash va SIRT3/SOD2 ni o‘rgandi. Bu ishlar funksional boshqarishni ko‘rsatadi, har bir to‘qimada universal o‘n baravar ko‘paytirgich yoki 80–90% faollik yo‘qolishini emas. M⁻¹·s⁻¹ birlikdagi to‘qnashish tezligi doimiysi s⁻¹ birlikdagi kcat ham emas. Marganesli SOD2 va uning katalizi tafsilotlari tezliklarni to‘g‘ri taqqoslash uchun muhim.
Superoksid kamayishi uning NO bilan raqobatlashuvchi ONOO⁻ hosil qilish reaksiyasini pasaytirishi mumkin, ammo oqim barcha qatnashchining konsentratsiyasi va joylashuviga bog‘liq. Ferment miqdorisiz ikki bimolekulyar doimiyni taqqoslash «yagona» himoya mexanizmi yoki superoksidning majburiy 10⁻¹¹ M chegarasini belgilamaydi. Oqsil nitrolanishi, Fe–S shikasti va temirga bog‘liq lipid oksidlanishi mumkin, lekin SIRT3 har yo‘qolganda muqarrar bir xil ferroptoz ketma-ketligini hosil qilmaydi.
SOD2 peroksid hosil qiladi, shuning uchun keyingi himoya GPx va Prx ni talab qiladi. IDH2 va boshqa yo‘llardan kelgan NADPH glutationreduktaza va tioredoksinreduktazani ta’minlaydi; tiklangan GSH va Trx peroksidazalarni qo‘llaydi. PRDX3/PRDX5 hamda turli GPx ning o‘z joylashuvi va substratlari bor; GPx4 lipid gidroperoksidlari uchun ayniqsa muhim. H₂O₂ ni muvofiq yo‘qotmasdan dismutatsiyani oshirish ROS ni to‘liq bartaraf etish emas.
Hafner CypD Lys166 deasetillanishi va Sirt3 geni o‘chirilgan sichqon kardiomiotsitlari mitoxondriyasida yoshga bog‘liq mPTP ochilish sezuvchanligini ko‘rsatdi; siklosporin A uni bostirdi. CypD o‘tkazuvchanlikni boshqaradi, o‘zi mustaqil yetarli pora tuzmaydi. ATP-sintaza va ANT ning taxminiy ishtiroki bitta yakuniy arxitekturani belgilamaydi. Ochilish depolyarizatsiya, shishish va o‘limga olib kelishi mumkin, ammo bu natijalar CypD ning barcha ta’sirini to‘liq to‘sish yoki infarktning universal «60–80%» kattalashishini tasdiqlamaydi. mPTP va siklosporin dalilini tushunish eksperimental boshqarishni klinik kardioproteksiyadan ajratishga yordam beradi.
Sundaresan, Jacobs va Tseng SIRT3 ning FoxO3 bilan ta’siri va antioksidant ekspressiya o‘zgarishini tasvirladi. Transkripsiya omilining bevosita deasetillanishi, ko‘chishi va bilvosita redoks signallarini farqlash zarur: SIRT3 ning asosan matriksda joylashuvi har bir yadro oqsiliga cheksiz kirishni anglatmaydi. Tegishli tajribalarsiz butun o‘qqa o‘zgarmas Lys271/Lys290, majburiy MDM2 blokadasi yoki FoxO3 umrining to‘rt baravar uzayishini nisbat berib bo‘lmaydi.
Yosh Sirt3-nokaut sichqonlar giperasetillanishga qaramay odatiy ratsionda normal ko‘rinishi mumkin. Aniqroq fenotiplar ochlik, yog‘li ovqatlanish, qarish va stressda yuzaga chiqadi. Hirschey ning 2011 yilgi ishi yog‘li ratsionda semizlik, insulin rezistentligi, giperlipidemiya va steatogepatitning tezlashishini ko‘rsatdi. Bu SIRT3 yetishmovchiligini odam diabetining universal birlamchi sababiga aylantirmaydi; MASLD va steatogepatit ham har qanday yog‘li infiltratsiyaning almashinadigan nomlari emas.
Hafner va Sundaresan yurak gipertrofiyasi, fibroz va stress sezuvchanligini o‘rgandi. Someya muayyan sichqon liniyasida Sirt3 bo‘lmasa kaloriyani cheklashning eshitishni himoya qilishi yo‘qolishini ko‘rsatdi. Bu natijalarni har bir hayvonda majburiy dilatatsion kardiomiopatiya jadvali yoki universal 80% o‘limga birlashtirib bo‘lmaydi. Ishemik va neyronal shikast modellari turli yakunlarni baholaydi; odamdagi assotsiatsiya, genetik model va bemorni davolash har xil dalilni talab qiladi.
O‘sma modellarida SIRT3 ROS/HIF-1α ga bog‘liq qayta dasturlashni cheklab, mitoxondrial chidamlilikni qo‘llashi mumkin. Kim va Finley o‘rganilgan tizimlarda o‘smani bostiruvchi mexanizmlarni ko‘rsatdi. Boshqa o‘smalarda saqlangan oksidlovchi almashinuv va stress himoyasi hujayra yashashini qo‘llashi mumkin. Gipoksiya, ROS, metabolitlar va prolilgidroksilazalar HIF barqarorlashuvining bir necha yo‘lini beradi; ularni temirning majburiy bevosita oksidlanishiga qisqartirib bo‘lmaydi. Bu ikki tomonlama xususiyat SIRT3 ni avtomatik faollashtirish yoki tormozlash o‘rniga o‘sma turi va bosqichiga e’tibor talab qiladi. U NAD⁺ ning har bir prekursoriga bir xil klinik qarshi ko‘rsatma ham o‘rnatmaydi.
NR va NMN NAD⁺ sintezida qatnashadi; bevosita transport, NR/NAM ga aylanish va turli a’zolar hissasi kontekstga bog‘liq. SLC12A8 ni odamning universal tasdiqlangan yagona NMN tashuvchisi deb bo‘lmaydi. CD38 NAD⁺ va bog‘liq metabolitlarni sarflaydi, lekin probirkadagi tormozlanish apigenin qo‘shimchasi tegishli to‘qima ekspozitsiyasiga yetishi va bemorda SIRT3 faolligini oshirishini isbotlamaydi. 78c birikmasi tasdiqlangan klinik qo‘shimcha kombinatsiyasi emas, tadqiqot yondashuvidir.
Elhassan ning 2019 yilgi randomizatsiyalangan kesishma tadqiqotida 12 keksa erkak 21 kun NR qabul qildi. Mushakdagi NAD⁺ metabolitlari va ayrim yallig‘lanish o‘lchovlari o‘zgardi, ammo o‘lchangan mitoxondrial bioenergetika yaxshilanmadi. Bu natija avtomatik qayta faollashish va’dasidan foydaliroq: muayyan ekspozitsiyadagi metabolik ta’sirni belgilaydi, odamda SIRT3 orqali klinik samarani emas.
Metformin va berberin energiya almashinuvi va AMPK ga bog‘liq signallarni o‘zgartirishi mumkin, lekin SIRT3 ning selektiv aktivatorlari emas. AICAR AMP-simon ZMP ga aylanadi; uni to‘g‘ridan-to‘g‘ri universal allosterik SIRT3 dorisi deyish noto‘g‘ri. Resveratrol, pterostilben va gidroksitirozol signal modulyatorlari sifatida o‘rganiladi; ekspressiya o‘zgarishi katalitik domenga bevosita bog‘lanishni isbotlamaydi. Hayvondagi o‘zgarmas «80% ga qarshi 1–2%» raqamlari odam biologik o‘zlashtirishini to‘g‘ri taqqoslamaydi. Kichik molekulalarni ishlab chiqish selektivlik, nishonga ta’sir va klinik yakunlar dalilini talab qiladi.
Mushak ishlashi va ovqatlanish rejimlari ATP ehtiyoji, yoqilg‘i oqimi va boshqaruvchilar ekspressiyasini o‘zgartiradi. HIIT, aerob mashq, TRE va FMD bir-birini almashtiradigan aralashuvlar emas. «PGC-1α 2–4 soatda, SIRT3 6–12 soatda» degan qat’iy ketma-ketlik yoki butun EPOC ni LCAD deasetillanishi bilan izohlash tegishli rejim uchun bevosita dalil talab qiladi. Mashq foydasini tan olish uning hammasi SIRT3 orqali yuz berishini taxmin qilishni talab etmaydi.
2013 yilda Peek sichqonlarda NAD⁺ sintezining sirkadiyal tebranishlari, asetillanish, SIRT3 va mitoxondrial nafas olish aloqasini ko‘rsatdi. Bu taqqoslashda namuna olish vaqtini muhim qiladi, ammo odamda NMN qabul qilishning eng yaxshi soatini yoki och qoringa ichish talabini belgilamaydi. Ochlikda ko‘plab gormon va substrat birga o‘zgaradi, shuning uchun ketozning o‘zi bir deasetilaza faolligini o‘lchamaydi.
NR/NMN, apigenin, berberin yoki metformin, pterostilben, R-ALA, asetil-L-karnitin, CoQ10, magniy va zaytun ekstraktini birlashtirish turli aralashuvlarni qo‘shadi. Bu kombinatsiya uchun klinik «SIRT3 yetishmovchiligi» davolash rejimi, optimal dozalar, o‘zaro ta’sir va uzoq muddatli yakunlar isbotlanmagan. Oziq moddaning normal almashinuvdagi vazifasi qo‘shimcha qabul tegishli oqsildan modifikatsiyani olib tashlashini ko‘rsatmaydi. Shuning uchun qo‘lyozmadagi dozalar va jadval davolash tayinlovi sifatida berilmaydi.
| O‘lchov | Nimani aks ettirishi mumkin? | Yakka o‘zi nimani belgilamaydi? |
|---|---|---|
| Asilkarnitinlar | Yog‘ kislotalari transporti/oksidlanishi muvozanati, ratsion va metabolik kasalliklar | LCAD yoki SIRT3 ning o‘ziga xos faollashuvi |
| β-Gidroksibutirat | Keton ishlab chiqarish va foydalanish, ovqatlanish holati | HMGCS2 deasetillanishi yoki universal 0,5–1,5 mM davolash maqsadi |
| Laktat/piruvat | Namuna olish va ishlov berish hisobga olingan sitozolik redoks juftligi | Bevosita matriks NAD⁺/NADH yoki I kompleksning aniq bir blokadasi |
| 8-OHdG | Oksidlanish bilan bog‘liq shikast/mahsulot chiqarilishining bir o‘lchovi | SOD2/IDH2 ning aynan SIRT3 orqali tiklanishi |
| GSH/GSSG | Tayyorlashda oksidlanishga sezuvchan muayyan namunadagi redoks havza | Tanadagi barcha mitoxondriya uchun umumiy bitta holat |
Qarshi ko‘rsatmani baholash muayyan dori va bemorga tegishli. Masalan, buyrak faoliyati buzilgandagi metformin cheklovlarini barcha tarkibiy qismga ko‘chirish yoki «SIRT3 faollashuvi»ga qarshi ko‘rsatma deyish mumkin emas. Onkologik mexanizmlar davolash bilan o‘zaro ta’sirni o‘rganishga asos bo‘ladi, ammo aniq moddaning klinik ma’lumotini almashtirmaydi. Bu o‘lchovlar tadqiqot va tegishli diagnostikada foydali, mustaqil «asetilomni qayta faollashtirish» testi sifatida emas.
| Nishon yoki o‘q | Asosiy natija | Xulosa chegarasi |
|---|---|---|
| LCAD | 2010 yilgi ishda Lys42; 2013 yilgi rekombinant ferment ishida Lys318/322 | Joylar, preparatlar va tur vazifalari farq qiladi |
| ACSS1/AceCS2 | Lys642 deasetillanishi fermentni faollashtiradi | Zamonaviy ACSS2 dan ajratish zarur |
| HMGCS2 | Lys310/447/473, faollik va och sichqon ketonlari | Moslashuvga hissa, ketogenezning yagona yo‘li emas |
| IDH2 | Lys413, faollik va NADPH ta’minoti | NADPH ning yagona manbai emas |
| SDHA va I kompleks | Asetillanish/faollik o‘zgarishi; NDUFA9 ta’siri | Har bir aniq joy yoki mexanik kontaktni belgilamaydi |
| ATP-sintaza | OSCP Lys139; boshqa ishda His135 orqali pH ga bog‘liq bog‘lanish | Nishon modifikatsiyasini SIRT3 ajralishidan farqlash |
| SOD2 | Turli ishlarda funksional Lys68/Lys122 | Universal ko‘paytirgich yoki H₂O₂ yo‘qotish yo‘q |
| CypD/FoxO3 | O‘tkazuvchanlik boshqarilishi va modellarning stress javobi | To‘liq hujayra o‘limi blokadasi yoki isbotlangan odam davosi yo‘q |
Bu taqdim etilgan qo‘lyozmaning narrativ sharhi bo‘lib, 2026 yil 8 oktabrda bahsli havolalar, mexanizmlar va strukturaviy yozuvlar maqsadli tekshirildi. NCBI/PubMed birlamchi tadqiqotlarining metama’lumotlari va annotatsiyalari hamda RCSB PDB yozuvlari ishlatildi; aniq savollar uchun stexiometriya, NAD⁺ transporti va odamdagi NR bo‘yicha zarur ishlar qo‘shildi. Qidiruv tizimli bo‘lmagan, eng yangi adabiyotni to‘liq qamrash da’vo qilinmaydi, rasmiy GRADE baholashi yoki tashqi taqriz o‘tkazilmagan. Annotatsiyalar ayrim mexanistik fikrlarning batafsil tekshirilishini cheklaydi; tasdiqlanmagan aniq raqamlar va klinik tayinlovlar ko‘chirilmagan.
SIRT3 mitoxondrial oqsillarni saqlash va yoqilg‘i o‘zgarishiga moslashishga yordam beradi, ammo uning funksiyasi joylashuv, mavjud NAD⁺ va aniq substratlardan kelib chiqadi. Biokimyo, muayyan joy modifikatsiyasi va genetik modellarning birlashuvi ayniqsa ishontiradi. Davolashga o‘tish odamda nishonga ta’sir, klinik yakunlar va nojo‘ya ta’sir o‘lchovlarini talab qiladi; faqat NAD⁺ oshishi yoki bitta laboratoriya markerining o‘zgarishi yetarli emas.
answer
answer
answer
answer