Асимметриялы диметиларгинин: ADMA және қантамыр қаупі
ADMA-ның метилденген ақуыздан түзілуі, DDAH1 катализі мен DDAH2 шектері, AGXT2, аргинин тасымалы және NOS тежелуі. Клиникалық байланыс, өлшеу және референс пен ем шегінің айырмасы.
ADMA-ның метилденген ақуыздан түзілуі, DDAH1 катализі мен DDAH2 шектері, AGXT2, аргинин тасымалы және NOS тежелуі. Клиникалық байланыс, өлшеу және референс пен ем шегінің айырмасы.
ADMA — L-аргининнің ағзада түзілетін метилденген туындысы, асимметриялы диметиларгинин. Ол азот тотығы синтазаларын, NOS, бәсекелі түрде тежей алады; осылайша ақуыз айналымын, аминқышқыл тасымалын және эндотелий қызметін байланыстырады. Оның жоғары концентрациясы бірқатар жүрек-қантамыр, бүйрек және зат алмасу ауруларында кездеседі. Бірақ биохимиялық механизм, клиникалық нәтижемен статистикалық байланыс және тәжірибеде пайдалы диагностикалық тест — дәлелдің әртүрлі деңгейлері.
ADMA-ны маркер әрі ауру үдерісіне ықтимал қатысушы ретінде зерттеуге негіз бар. Инфузиялық тәжірибелер концентрациясын өзгерту гемодинамикаға әсер ететінін көрсетеді, ал бақылаулық зерттеулер оны кейбір нәтижелермен байланыстырады. Бұл бір қан талдауы аурудың себебін түсіндіреді, жеке қауіптің нақты мөлшерін береді немесе ем сызбасын анықтайды деген сөз емес. Плазмадағы көрсеткішті белгілі жасушада, NOS маңындағы бос ADMA мөлшерінен ажырату әсіресе маңызды.
Аргининнің бүйірлік тізбегі гуанидин тобымен аяқталады; бұл сақина емес. Оның шеткі азот атомдары метилденгенде бірнеше туынды пайда болады. ADMA-да екі метил тобы бір шеткі азотта орналасады, ал симметриялы диметиларгининде, SDMA, әр азотқа бір топтан келеді. Бұлар формуласы бірдей, метил топтарының орналасуы бөлек позициялық изомерлер. L-NMMA, монометил-L-аргинин, тек бір метил тобына ие.
| Қосылыс | Бос негіздің формуласы | Молярлық масса, г/моль | Маңызды қызметтік айырма |
|---|---|---|---|
| L-аргинин | C₆H₁₄N₄O₂ | 174,20 | NOS және басқа алмасу жолдарының субстраты |
| L-NMMA | C₇H₁₆N₄O₂ | 188,23 | Эндогендік NOS тежегіші және DDAH1 субстраты |
| ADMA | C₈H₁₈N₄O₂ | 202,25 | NOS тежегіші; DDAH1 және AGXT2 арқылы метаболизденеді |
| SDMA | C₈H₁₈N₄O₂ | 202,25 | NOS-тың әдеттегі тікелей тежегіші емес; тасымалмен және бүйрек қызметімен байланысты |
Физиологиялық pH-та гуанидин бөлігі негізінен оң зарядын сақтайды. Метилдену сутектік байланыс донорларының қолжетімділігін, гидрофобтықты және ақуыздардың тануын өзгертеді; зарядты жай ғана жоймайды. Сондықтан бірдей масса бірдей биологиялық әсерді білдірмейді. Талдау әдісі де екі изомерді ажыратуға тиіс.
ADMA мен L-NMMA эндотелийлік eNOS, нейрондық nNOS және индукцияланатын iNOS-ты тежей алады. Тежелу тұрақтылары изоформаға, субстратқа және тәжірибе жағдайына тәуелді. Бір Ki барлық тінге ортақ тұрақты емес. SDMA-ның кейбір модельдерде аргинин қолжетімділігіне немесе қабынуға әсері NOS-ты тікелей бәсекелі тежеуден бөлек қарастырылады.
ADMA-ның негізгі көзі — метилденген аргинин қалдықтары бар ақуыздардың ыдырауы. Ақуыз-аргининметилтрансферазалар, PRMT, S-аденозилметиониннен, SAM, метил тобын ақуыз құрамындағы аргининге тасымалдайды. Донор S-аденозилгомоцистеинге, SAH, айналады. Тағамдық немесе плазмалық бос аргинин осы жолмен тікелей бос ADMA-ға айналмайды.
I типті PRMT алдымен монометилденген, кейін асимметриялы диметилденген қалдық түзеді. PRMT1 осы типке кіреді, бірақ I тип тек PRMT1-мен шектелмейді: өзге мүшелердің субстраттары мен қызметтері бөлек. II тип, соның ішінде PRMT5 пен PRMT9, монометилденген аралық өнім арқылы симметриялы диметилдену береді. PRMT7 III типке жатады, оған монометилдену тән (Zurita-Lopez және т.б., 2012); Yang және әріптестері (2015) PRMT9 II типін растады. Ақуыз тізбегін танудағы айырмалар барлық PRMT үшін бір мотивті ұсынуға мүмкіндік бермейді.
Метилдену ақуыз әрекеттесуін, РНҚ өңделуін, транскрипцияны, хроматинді және сигнал кешендерін реттейді. Бұл қалыпты физиологияның бөлігі. Бос ADMA мөлшері PRMT экспрессиясымен қатар метилденген ақуыздардың түріне, олардың түзілуі мен ыдырауына, тасымалға және метиларгининдердің кейінгі шығарылуына тәуелді.
SAM және метил топтарының алмасуы метилдің шығу тегін түсіндіреді. SAM қолжетімділігі артса, плазмалық ADMA міндетті түрде сызықтық өспейді: SAM/SAH арақатынасы, фермент реттелуі, тін және ақуыз айналымы араласады. Біркөміртекті алмасу мен гомоцистеин осы жүйемен тоғысады, бірақ оны алмастырмайды.
Убиквитин–протеасома жүйесі көптеген жасушаішілік ақуыздарды ыдыратады. Протеасома пептидтер түзеді, одан кейін пептидазалар аминқышқылдар мен метиларгининдерді босатады. Лизосомалық ыдырау және аутофагия да қатысады: жеткізілген ақуыздар мен органеллалар гидролазалармен, соның ішінде катепсиндермен бұзылады.
Протеолиздің жеделдеуі алғы заттар ағынын ұлғайтуы мүмкін, бірақ бос концентрация түзілу мен жойылу теңгеріміне байланысты. Қабыну, катаболизм, сепсис және ауыр аурулар фермент экспрессиясын, орган қызметін, тасымалды және таралу көлемін қатар өзгертеді. Ақуыз ыдырауының кез келген үдеуі ADMA-ның бірдей жоғарылауын болжамайды.
Achan және әріптестері (2003) адамдағы метаболизм мен инфузия зерттеуінде тәулігіне шамамен 300 мкмоль ADMA түзілетінін, оның 250 мкмоль шамасы DDAH-тәуелді жолмен метаболизденетінін бағалады. Бұл белгілі жағдайдағы тарихи бағалау, әр адамға бекітілген тәуліктік норма емес. Молярлық масса бойынша 300 мкмоль шамамен 60,7 мг болады; тәуліктік ағын плазмада бір мезетте тұрған мөлшерге тең емес.
Жасушалық пулдың теңгерімі:
A — таңдалған компартменттегі бос ADMA мөлшері, P — протеолиз арқылы түзілуі, v — метаболизм жылдамдығы, J — мембраналық ағын. Барлық мүшенің бірлігі уақытқа шаққандағы зат мөлшері болуы керек. Концентрация үшін көлем ескеріледі. Плазмада тіннен шығу, таралу және экскреция қосылады; жасушадан экспорт ағзадағы ADMA-ны жоймайды.
Тұрақты P және сызықтық kA жойылуы бар өте қарапайым модельде стационарлық мөлшер P/k. k 30% кемісе, мөлшер 1/0,7, шамамен 1,43 есе өседі, міндетті екі–төрт есе емес. Нақты жүйеде сызықтық емес реакциялар, балама жолдар және кері байланыс әсер етеді. Модель мен жағдай көрсетілмей әмбебап жартылай шығарылу кезеңі не жинақталу еселігі берілмейді.
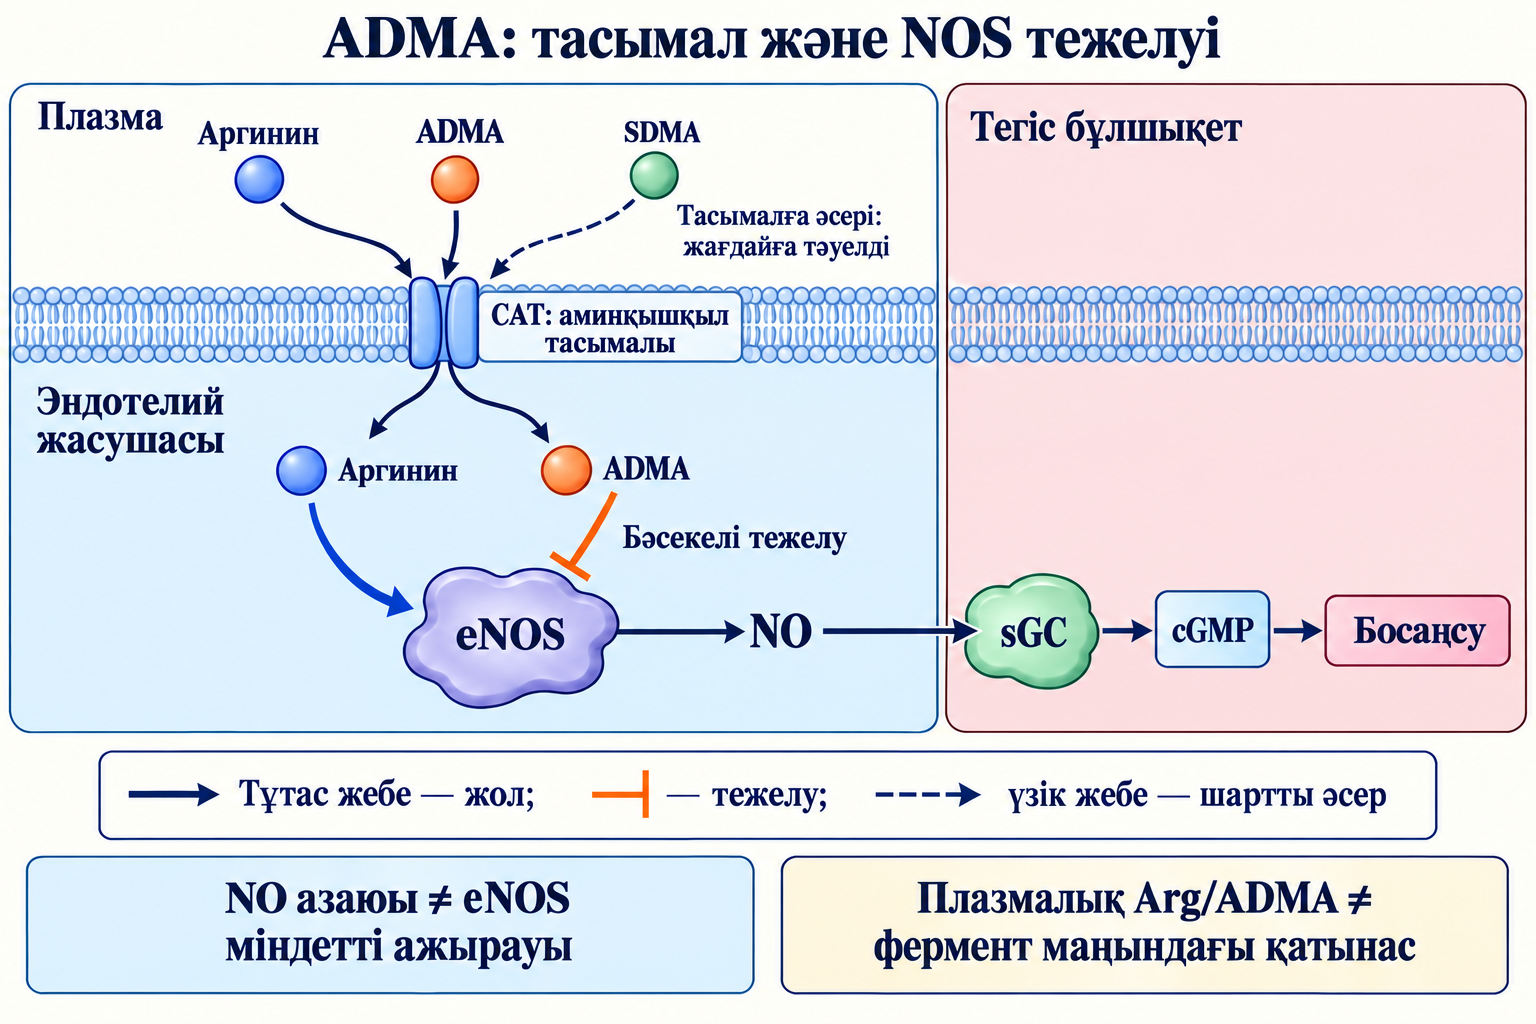
Катиондық аминқышқылдарды y⁺ жүйесінің тасымалдаушылары, соның ішінде SLC7A1 кодтайтын CAT1 өткізеді. CAT2A және CAT2B — бір SLC7A2 генінің нұсқалары; CAT3 SLC7A3 арқылы кодталады. Олардың тіндік экспрессиясы мен кинетикасы өзгеше. CAT1 көптеген жасушаларда, оның ішінде эндотелийде маңызды; CAT2 нұсқалары бауыр алмасуы мен белсенген жасушалар жауабына қатысады.
Тасымал көбіне Na⁺-қа тәуелсіз және мембрананың екі жағындағы электрохимиялық жағдай мен концентрацияға байланысты. Ішкі субстрат сыртқының өтуін жеделдететін трансстимуляция болуы мүмкін. Бірақ әр жағдайда бір аргининді бір ADMA-ға міндетті алмастыру деп сипаттау артық жеңілдету болады.
Аргинин мен метиларгининдер тасымалдаушыларға әсер етеді, бірақ тасымал бәсекесі NOS-пен байланысуға тең емес. SDMA кей жағдайда аргинин қолжетімділігін төмендетуі мүмкін, алайда ADMA секілді тікелей тежегіш болып саналмайды. Субмикромолярлық плазма мәндерін әлдеқайда жоғары конкурент мөлшері бар тәжірибеге есепсіз көшіруге болмайды.
Аргинин парадоксы — жалпы жасушалық аргинин Km-нен жоғары болса да қосымша аргининнің NO түзілуін кейде өзгертуі. Компартменттер, eNOS жанындағы тасымал кешендері, метиларгинин бәсекесі және цитруллинді қайта пайдалану ықтимал түсіндірмелер. Жасуша экстрактындағы жалпы аргинин белсенді орталыққа жететін субстратты дәл көрсетпейді.
Диметиларгинин-диметиламиногидролаза DDAH1 ADMA мен L-NMMA-ны гидролиздейді. ADMA-дан L-цитруллин мен диметиламин, L-NMMA-дан L-цитруллин мен метиламин түзіледі. SDMA бұл гидролазаның әдеттегі субстраты емес. DDAH — фермент, транскрипциялық фактор емес.
Ескі сызбалар DDAH1-ді негізінен нейрондық NOS, DDAH2-ні эндотелийлік NOS-пен байланыстырып, екеуін бірдей ADMA гидролазасы деп көрсететін. Мұндай қатаң бөлу тіндік таралу мен қазіргі катализ деректерін толық сипаттамайды.
Ragavan және әріптестері (2023) көпорталықты зерттеуде рекомбинантты ақуыздарды, жасушалық араласуларды және тышқан модельдерін салыстырды. Нәтижелер DDAH2-нің ADMA-ны метаболиздеуін растамады, ал DDAH1 белсенді болды. Сондықтан бұрынғы жасушалық жұмыстарда DDAH2 өзгертілген соң ADMA азаюы осы ақуыздың тікелей гидролизін дәлелдемейді.
DDAH2 биологиялық маңызын сақтайды: қантамыр ремоделденуі, ангиогенез, сигнал және метаболизм үдерістерімен байланысты. Әсері ADMA-ның тікелей алмасуынан тәуелсіз немесе басқа жүйе арқылы болуы мүмкін. Ақуыз атауы реакцияны растамайды; генетикалық араласудан кейін метаболит өзгеруі өздігінен химиялық жолды анықтамайды. Каталитикалық өлшеу, өзге ферменттерді бақылау және сәйкес модель қажет.
DDAH орталық каталитикалық аймақты қоршаған қайталанатын α/β-құрылымға ие. Каталитикалық цистеин мен басқа қалдықтар нуклеофильді шабуылды, қышқыл–негіздік тасымалды және белсенді орталық геометриясын қамтамасыз етеді. Цистеин гуанидин көміртегіне шабуылдап, ковалентті аралық кешен түзеді; метилденген амин ажырап, кейінгі гидролиз цитруллин береді әрі ферментті қайта қалпына келтіреді. Оны түсіндірместен кәдімгі карбонилдік тиоэфир деу дұрыс емес.
Адам DDAH1 қалдықтары бастапқы метиониннен санағанда Cys274, His173 және Asp127 деп белгіленеді; құрылымдық жарияланымдарда бір қалдыққа ығысқан нөмір де кездеседі. Оны бактериялық нөмірмен шатастыруға, адам аспартатын бактериялық глутаматпен ауыстыруға болмайды.
1H70 жазбасы Murray-Rust және әріптестері (2001) жариялаған Pseudomonas aeruginosa DDAH-ының C249S мутанты мен цитруллинге қатысты. Бұл адам ақуызы емес. Адамның цитруллин кешені Leiper және әріптестерімен (2007) байланысты 2JAI жазбасында бар. Түр, мутация және нөмірлеу құрылымдық қорытындыны көшіруде маңызды.
Қарапайым кинетика:
[A] — реакция жүйесіндегі ADMA, Km — нақты препарат пен жағдай параметрі, Vmax — берілген белсенді фермент мөлшеріндегі шекті жылдамдық. Km-нен әлдеқайда төменде байланыс шамамен сызықтық. Бір рекомбинантты ақуыздың Km, kcat немесе pH жауабы барлық тіннің шығарылуын анықтамайды. Белсенді ақуыз мөлшері, тотығу өзгерістері, субстратқа қолжетімділік және балама алмасу маңызды.
Каталитикалық цистеин DDAH1-ді кейбір тиол модификацияларына сезімтал етеді. Leiper және әріптестері (2002) S-нитрозилденуді және белсенділік өзгерісін тәжірибеде көрсетті. S-нитрозотиол үшін тиісті нитроздаушы химия қажет; әр NO молекуласы кез келген тиолмен міндетті тікелей әрекеттеспейді.
Тотығу сульфендік форма, глутатионмен аралас дисульфидтер және басқа күйлер арқылы жүруі мүмкін. Кейбірі жасушаның қалпына келтіруші жүйелерімен қайтады; тереңірек тотығуды қайтару қиын болуы мүмкін. Нақты жол, жылдамдық және ақуыз ыдырауына әсер өлшенуі керек. Алғашқы қадамның стехиометриялық мысалы:
Бұл барлық DDAH1 дәл солай әрекеттеседі немесе әр RSOH қайтымсыз дегенді білдірмейді. Бір пероксинитрит молекуласынан тиол бірден сульфонатқа айналып, қоса нитрит түзілетін теңгерілмеген реакция жарамайды.
Тотығу стрессі DDAH1 белсенділігін азайтуы, жоғары ADMA NO түзілуін шектеуі мүмкін. Белгілі жағдайда бұл қолайсыз кері байланысты сақтайды. Бірақ жүйе геометриялық үдеуге міндетті емес: AGXT2, тасымал, орган алмасуы және ақуыз жөнделуі бар. Тотыққан LDL, гомоцистеин, цитокин не жоғары глюкоза әсері модельге тәуелді, барлық тіндегі барлық DDAH бірдей тежеледі дегенді дәлелдемейді.
GPX4 және мембрана липидтерінің пероксидтік тотығуы іргелес редокс-механизмді түсіндіреді. GPX4 липид гидропероксидтерін тотықсыздандырады, ал бұл жол аргинин қолжетімділігі мен ADMA ферменттік алмасуына қатысты. Стресс арқылы байланысу жолдарды өзара алмастырмайды және GPX4 өсуі міндетті ADMA қалыпқа келуін дәлелдемейді.
Аланин-глиоксилатаминотрансфераза 2, AGXT2, B6-ның белсенді коферменті пиридоксальфосфатқа, PLP, тәуелді митохондриялық фермент. Бүйрек пен бауырда экспрессияланады, субстраттары кең; метиларгининнен бөлек β-аминоизобутират және басқа заттар маңызды.
AGXT2 гуанидинді гидролиздемей, трансаминдеу жүргізеді. ADMA-ның α-амин тобын глиоксилатқа тасымалдаса, тиісті α-кетоқышқыл, әдетте DMGV, және глицин түзіледі. Акцептор пируват болса, аланин пайда болады:
Бұлар бөлек акцепторлы балама реакциялар, екі аминқышқылды қатар беретін тізбек емес. SDMA да AGXT2 арқылы тиісті симметриялы α-кетотуындыға айнала алады. Глицин DDAH1 өнімі емес. Глиоксилат реакциясында болуы глицинді ішу ADMA шығарылуын жылдамдататынын дәлелдемейді.
Rodionov және әріптестері (2010) адам AGXT2-сін эксперименттік жүйеде зерттеп, ADMA төмендеуін және оның NO түзілуін тежеуінен қорғанысты көрсетті. Бұл жолдың бар екенін қолдайды, барлық адам үшін шығарылудың бірдей үлесін белгілемейді. Ген нұсқалары бірнеше субстратты өзгертеді; SDMA не β-аминоизобутиратпен байланыс ADMA немесе клиникалық нәтижеге дәлелденген әсер емес.
DMGV биологиялық сұйықтықта өлшенеді және метаболикалық маркер ретінде зерттеледі. Ол бәрінде белгілі жылдамдықпен жойылатын жай қауіпсіз қалдық емес. B6 жеткіліктілігі PLP-реакцияларға керек, бірақ дозаны арттыру AGXT2 немесе клиникалық қауіптің жақсаруына кепілдік бермейді.
Kittel және әріптестері (2014) 400 сау еріктіні зерттеді: AGXT2 rs37369 (Val140Ile) және rs16899974 (Val498Leu) нұсқалары SDMA және/немесе β-аминоизобутиратқа әсер етті, бірақ ешқайсысы плазмалық ADMA-ны өзгертпеді. Ферменттің генетикалық өзгерісі автоматты жоғары ADMA не клиникалық қауіп емес.
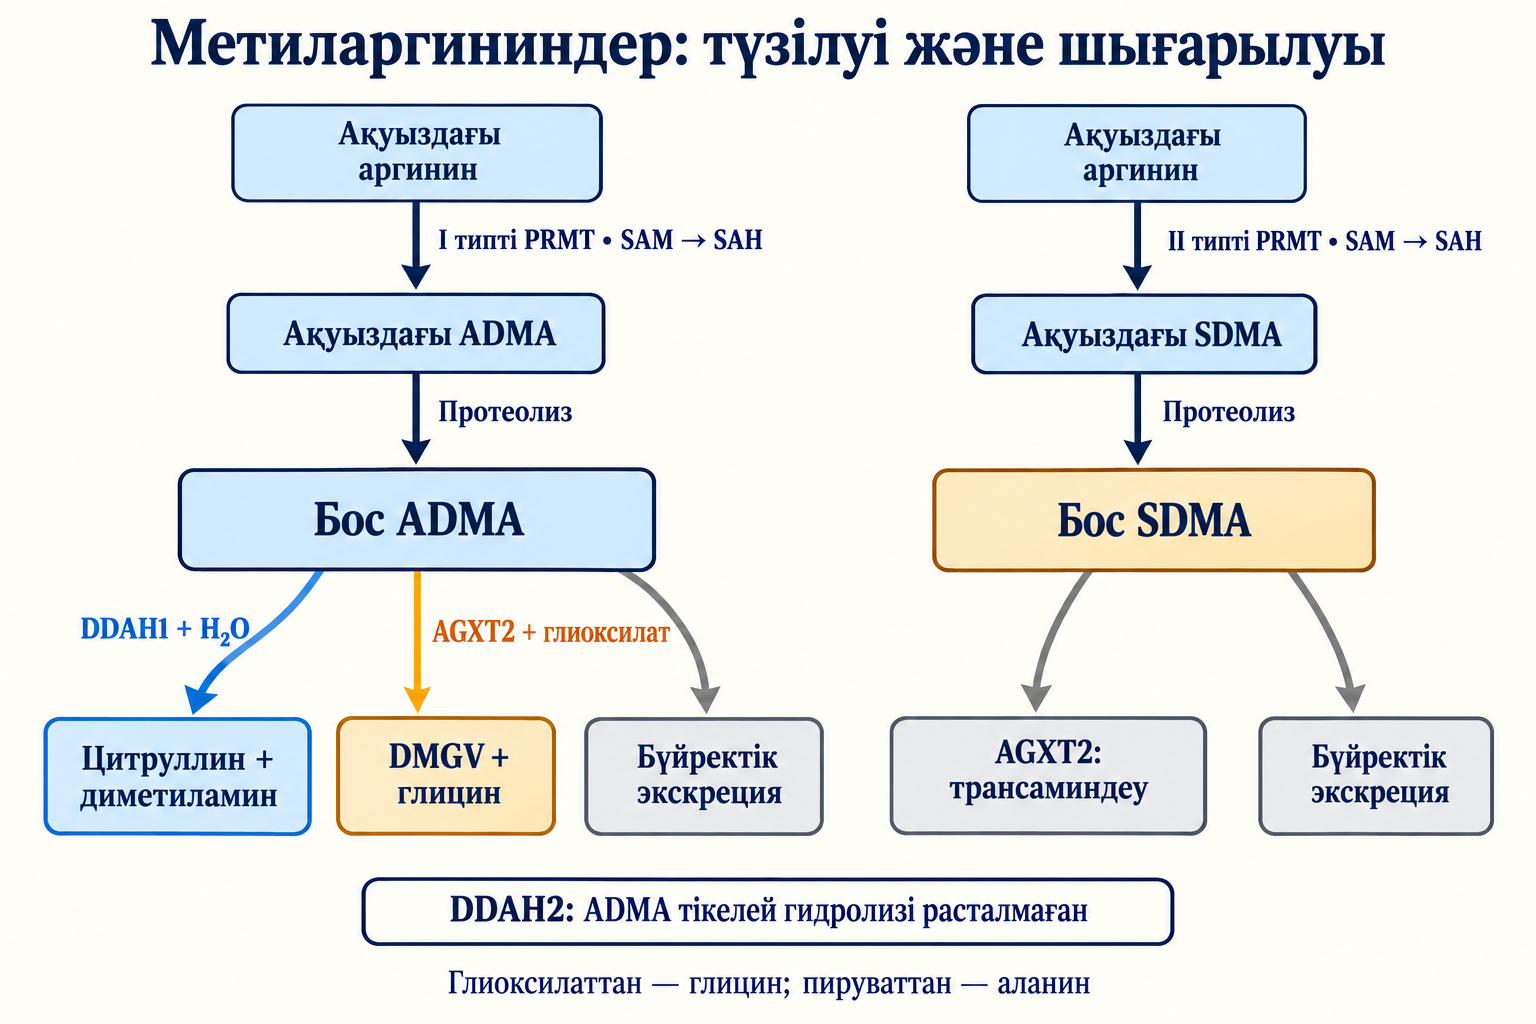
ADMA-ның бір бөлігі бүйрекпен шығады, едәуір бөлігі ферменттік метаболизмге түседі. Бүйрек тек сүзбейді, метиларгининдерді өңдейді; бауыр да ADMA-ны ұстап, метаболиздей алады. Созылмалы бүйрек ауруында жоғарылау тек шумақтық сүзілу азаюымен түсіндірілмейді.
SDMA бүйрек қызметімен тығызырақ байланысты әрі сүзілу кемігенде көбіне өседі. Алайда AGXT2 жолы оны мүлде метаболизденбейтін, үнемі 95% бір жолмен шығарылатын зат деуге мүмкіндік бермейді. Түзілу, таралу, жеке жағдай әсер етеді. Адам медицинасында SDMA бүйректің стандартты бағасын автоматты алмастырмайды; ветеринарлық критерийлерді адамға көшіруге болмайды.
Бүйрек бұзылғанда уремиялық орта, ақуыз айналымы, қабыну мен фермент белсенділігі қатар өзгереді. Бұл ADMA жиналуын және эндотелий бұзылуын байланыстыра алады. Қантамырдың бүйрек перфузиясына әсері байланысты екіжақты етеді. Бір тұрақты еселік ауру сатысын анықтамайды; ADMA/SDMA өздігінен бауыр не бүйректегі «блокты» таппайды.
Қарапайым бәсекелі модельде аргинин мен ADMA ферментке байланысуға таласады. Бастапқы жылдамдық:
[S] — қолжетімді L-аргинин, [I] — ADMA, Ki — сол жүйенің тежелу тұрақтысы. Көрінерлік Km өседі, жеткілікті қаныққандағы Vmax қарапайым модельде өзгермейді. Бұл тірі жасушада NO-ның ең жоғары түзілуі сақталады деген кепіл емес. Тасымал, NOS мөлшері мен күйі, кофакторлар, оттегі, тотықсыздандырғыш эквиваленттер және NO тұтынылуы араласады.
NOS L-аргининді N-гидрокси-L-аргинин арқылы NO мен цитруллинге айналдырады. Электрондар NADPH-тан флавин орталықтарымен гемге өтеді; кофакторлар, оның ішінде тетрагидробиоптерин, BH4, сәйкес күйде болуы керек. eNOS үшін кальций, кальмодулин, фосфорлану және орналасу маңызды. Барлық циклді ADMA темірге оттегі жолын жабады немесе BH4-ті міндетті ығыстырады деп түсіндіру жарамайды.
Аргинин көбейгенде кей жағдайда бәсекелік тежеу әлсірейді. Бұл қоспаның клиникалық пайдасын дәлелдемейді: тасымал шектеулі, аргиназа мен басқа жолдар субстратты қолданады, жергілікті арақатынас плазмадан бөлек. NO метаболиттері аз инфарктқа немесе өлімге тең емес.
Өнімді eNOS-та электрон ағыны NO синтезіне жұмсалады. BH4 тапшылығы не тотығуы, тиол өзгерістері және басқа жағдайлар ағынның бір бөлігін супероксидке бұрады; бұл NOS реакциясының ажырауы деп аталады. ADMA эндотелий бұзылуының ортасына қатыса алады, бірақ тежеу әр ферментті автоматты супероксид көзіне айналдырмайды.
Кей жағдайда тежегіш NO-мен бірге NOS-тәуелді радикал ағынын да азайтады. «ADMA орталықты алды — барлық eNOS бірден супероксид береді» әмбебап емес. Дәлел үшін өлшеу және NADPH-оксидазалар, митохондриялар секілді өзге көздерді бақылау керек.
NO супероксидпен әрекеттеседі:
Пероксинитрит түзілуі қолжетімді NO-ны да жұмсайды. BH4 пен ақуыз тотығуы бұзылысты күшейте алады, бірақ орынға, қорғаныс жүйелеріне және бәсекелі реакцияларға тәуелді. Плазмалық ADMA эндотелий супероксидін, BH4 мөлшерін немесе пероксинитрит жылдамдығын тікелей өлшемейді.
NO тегіс бұлшықетте еритін гуанилатциклазаны белсендіреді, cGMP арттырып, қантамыр босаңсуына ықпал етеді. Тромбоциттерге, лейкоцит–эндотелий әрекеттесуіне және ремоделденуге қатысады. Қолжетімділік азайса, кедергі артуы және қорғаныс қызметі өзгеруі мүмкін. Бірақ симпатикалық жүйе, эндотелин, простаноидтар, жергілікті метаболиттер және басқа жолдар қатар реттейді.
Achan және әріптестері (2003) 12 сау ер адамда рандомизацияланған қос соқыр инфузиялық тәжірибе өткізді. ADMA плацебомен салыстырғанда жүрек жиілігін, жүрек шығымын, орташа қысымды және жүйелік кедергіні өзгертті. Бұл белгілі жағдайда адам гемодинамикасына тікелей әсердің дәлелі. Табиғи жоғары ADMA-ның өмір бойғы әсерін немесе бір анализден жеке қауіп шегін анықтамайды.
Бүйрек пен ми микроайналымы NO-ға сезімтал, бірақ тек соған тәуелді емес. Бір концентрациядан әр пациенттің артериола диаметрі не ми ағыны бірдей төмендейді деуге болмайды. NO, қысым және жергілікті автореттелу органдарға бөлек әсер етеді.
Scalera және әріптестері (2004) ADMA-ға қайталап ұшыраған эндотелий жасушаларын өсірді. Қартаюға тән β-галактозидаза мен теломер қысқаруы күшейіп, теломераза белсенділігі азайды; редокс көрсеткіштер және MCP-1 мен интерлейкин-8 бөлінуі өзгерді. Бұл эксперименттік фенотип, адамның қантамыр жасын плазма арқылы дәл анықтау емес.
ДНҚ зақымына жауап, жасуша циклінің тоқтауы және қартайған жасушаның секреторлық фенотипі созылмалы стрессті талқылауға көмектеседі. Бір тәжірибеге барлық p53/p21 қадамын, SASP құрамын және адамдағы нақты теломераза жоғалуын өлшеусіз телуге болмайды. Жасуша өсіндісі тамыр қабырғасынан көрші жасушалармен, ағынмен, қалпына келумен және әсер ұзақтығымен ерекшеленеді.
Қабынумен байланыс ADMA-ны NF-κB не моноцит тартылуының жалғыз себебі етпейді. Қабыну ADMA өзгерісінен бұрын немесе ортақ аурудың бөлігі болуы мүмкін. Араласу бағыты мен басқа механизмдерді бақылау маңызды.
Нәтиже топқа, соңғы көрсеткішке және өлшеу әдісіне тәуелді. Ауруы бар науқастағы жоғары ADMA жалпы популяциядан басқа болжамдық мәнге ие болуы мүмкін. Ең жоғары және ең төмен үштен бірді салыстырудың қауіп қатынасы адамның абсолюттік ықтималдығына тікелей тең емес.
| Бастапқы зерттеу | Дизайн және топ | Нәтиженің мәні | Қорытынды шегі |
|---|---|---|---|
| Schulze және т.б., 2006, CARDIAC | Көпорталықты жағдай–бақылау: 131 коронарлық жағдай және 131 сәйкестендірілген бақылау | Қолда бар коронарлық аурумен байланыс | Проспективті диализ тобы немесе ем сынағы емес |
| Schnabel және т.б., 2005, AtheroGene | Коронарлық ауруды проспективті бақылау; ADMA 1874 адамда өлшенген | Бастапқы жоғары мән жүрек-қантамыр өлімі не өлімсіз инфарктпен байланысты | Әмбебап шек бермейді |
| Böger және т.б., 2009, Framingham | 3320 адам, шамамен 10,9 жыл | ADMA және Arg/ADMA жалпы өліммен байланысты | ADMA, аргинин, олардың қатынасы жаңа жүрек-қантамыр ауруымен байланысты болмады |
| Tang және т.б., 2008 | Созылмалы систолалық жеткіліксіздігі бар 132 пациент | Метиларгининдер диастолалық көрсеткішпен, ADMA қолайсыз нәтижемен байланысты | Шағын арнайы топ; ADMA-ға қарай емнің пайдасын дәлелдемейді |
| Dückelmann және т.б., 2008 | Жедел декомпенсациясы бар 118 пациент | ADMA болашақ оқиғаларды ажыратпады; NT-proBNP ақпаратты болды | Маркердің құны клиникалық жағдайға тәуелді |
AtheroGene-де жоғарғы және төменгі үштен бір үшін HR 2,48, 95% СА 1,52–4,06 болды; қосымша модельдерде байланыс сақталды. Бұл зерттеуішілік салыстыру, «0,7-ден жоғары ADMA кез келген адамның қаупін екі есе өсіреді» ережесі емес. Framingham-да жалпы өліммен түзетілген байланыс бір стандарттық ауытқуға HR 1,21, 95% СА 1,07–1,37, бірақ жаңа жүрек-қантамыр ауруына байланыс болмады. Әртүрлі нәтижені әмбебап болжамға біріктіруге болмайды.
Коронарлық ауру, араласу немесе жүрек жеткіліксіздігі бойынша оң деректер зерттеуді қолдайды. Олар ADMA тропонинді, NT-proBNP-ні немесе кеуде ауырсынуын тексерудің стандартын алмастырады дегенді білдірмейді. Енгізу үшін қайталанушылық, сыртқы валидация, қабылданған модельге қосымша құн және пациентке пайдалы шешім өзгерісі керек.
Жүрек жеткіліксіздігінде NO азаюы тамыр жүктемесіне, миокард босаңсуына және өкпе кедергісіне ықпал етуі мүмкін. cGMP, кальций және жиырылғыш ақуыз жолдары байланысты ықтимал етеді. Бірақ кез келген диастолалық бұзылысты ADMA-ның SERCA2a-ға тікелей әсерімен түсіндіру немесе барлық түрінде бірдей екі–үш есе жоғарылауды болжау дұрыс емес. Бүйрек, ем, ауырлық және қосалқы ауру әсер етеді.
Бүйрек ауруында ADMA бұзылған алмасуды көрсетуі әрі эндотелийге қатысуы мүмкін. Нәтижемен байланыс қысым, сұйықтық, липид, анемия, минерал алмасуы және негізгі себеп қаупін жоймайды. Лабораториялық төмендеу клиникалық жақсаруға дәлел емес.
nNOS және eNOS жүйке сигналы мен нейроваскулярлық байланысқа қатысады. Плазма нейрон не ми эндотелийіндегі мөлшер емес. Pikula және әріптестері (2009) Framingham-да ADMA-ны мидың кейбір МРТ-тамыр зақым белгілерімен байланыстырды. Бақылау ақ зат зақымын, глимфалық тасымал бұзылуын немесе нақты адамның деменциясын ADMA тікелей туғызатынын дәлелдемейді.
Stühlinger және әріптестері (2002) ADMA мен инсулин арқылы глюкоза шығарылуының бұзылуы арасында байланыс тапты. Зерттеудің бір бөлігінде сезімталдықтың дәрілік жақсаруы ADMA төмендеуімен қатар жүрді. Бұл метаболизм мен тамыр жолдары тоғысуына сай, бірақ әр адамдағы себеп бағытын немесе диабеттің жеке критерийін анықтамайды.
Жоғары глюкоза модельде реактивті оттегін, PKC, DDAH1 экспрессиясы не белсенділігін және басқа үдерістерді өзгерте алады. DDAH1 бос ADMA синтезін бастайтын транскрипциялық фактор емес, фермент болып қалады. Ақуыз метилденуі, ыдырауы және жойылуы азаюы қатысады. Бүйрек пен ем айырманы арттырады, диабет барлық адамда бірдей ADMA өсірмейді.
Гомоцистеин метионин циклімен, редокс ортамен және тамыр көрсеткіштерімен байланысты. Метионин жүктемесі ADMA мен эндотелий өзгерісін көрсетті, бірақ бұл күнделікті тамақ емес. Фолат пен B12 реметилдеуге, B6 транссульфурация мен PLP реакцияларына қатысады. Расталған тапшылықты түзетудің жеке маңызы бар, бірақ гомоцистеин төмендеуі ADMA қалыпқа келуін немесе оқиғалардың алдын алуды автоматты дәлелдемейді.
Сұйықтық хроматографиясы флуоресценттік не масс-спектрометриялық детекциямен және иммундық талдаулар қолданылады. Валидтелген LC-MS/MS аргинин мен метиларгининдерді бірге өлшей алады; селективтік, калибрлеу, матрица және дәлдік расталуы керек. Бірдей массадағы ADMA/SDMA-ны тек ортақ прекурсор сигналы ажыратпайды.
Хроматографиялық бөлу және өнім иондары нақты әдіске сай келеді. ADMA m/z 203→46 шамасында диметиламмонийді көрсетуі мүмкін; SDMA 203→172 бейтарап фрагменттің жоғалуын көрсетеді, «массасы 172 метиламмоний» емес. Бұл әмбебап аспап баптауы емес. Изотоптық ішкі стандарттар жоғалу мен матрицаны бақылауға көмектеседі, валидацияны алмастырмайды.
Дериваттау әдіске тәуелді, барлық LC-MS/MS-қа міндетті емес. Martens-Lobenhoffer және Bode-Böger сипаттаған HILIC әр талдауда бутил эфирі қажет деген тұжырымға балама. Сандық анықтау шегі, вариация коэффициенті мен уақыт нақты процедураға тән, ADMA тестінің тұрақты қасиеті емес.
Бәсекелі ELISA үлкен зерттеуге ыңғайлы, бірақ антидене, дайындау, айқаспалы реактивтік және матрицаға тәуелді. Хроматографиямен ығысуды барлық жиынтыққа бір пайызбен түзетуге болмайды. Әсіресе көп концентрациядағы өзге затпен әлсіз реакцияның өзі маңызды болуы мүмкін; нақты жиынтықта бағаланады. Бір шек кестесімен платформаны салыстыру тек сәйкестік тексерілгенде орынды.
Бірлік, үлгі түрі, сақтау, әдіс және лаборатория референсі қажет. Қайта өлшеуде бір валидтелген әдіс қолайлы. Уақыт, тағам, жедел ауру және дәрі контексті өзгертеді, бірақ дәлелденген циркадтық ем не ортақ қан алу сағатын бекітпейді.
Schwedhelm және әріптестері (2009) Framingham-ның клиникалық қантамыр ауруы, гипертензия, диабет не семіздігі жоқ 1126 темекі шекпейтін адамында LC-MS/MS референсін анықтады. Орташа 0,52 мкмоль/л, стандарттық ауытқу 0,11; 2,5 және 97,5 процентиль шегі 0,311 және 0,732 мкмоль/л.
Бұл таңдалған топтың нақты әдістегі таралуы; оңтайлы, ауру алдындағы, ауыр қауіп немесе міндетті қоспа санаттары емес. Аралықтан шығу міндетті ауруды, ішінде қалу толық қорғанысты білдірмейді. Жас, ауру, әдіс пен сұрақ әмбебап шкаладан маңызды.
Плазмадағы Arg/ADMA бірдей бірлікпен есептеледі:
Қатынас өлшемсіз, бірақ eNOS орталығындағы арақатынасты тікелей өлшемейді. 100-ден төмен мән міндетті ажырау емес. Өзге зерттеу көрсеткіші — аргининнің жалпы биожетімділік қатынасы, Arg/(орнитин+цитруллин), ол метаболизм өнімдерін қамтиды. Атау, формула және мағынаны араластыруға болмайды.
| Көрсеткіш | Зерттеуге көмектесетін сұрақ | Өздігінен анықтамайтын нәрсе |
|---|---|---|
| ADMA | Тежегіш түзілуі мен жойылуының теңгерімі | Себеп, ажырау деңгейі немесе жеке ем |
| SDMA | Метиларгинин және бүйрек қызметі | Тікелей тежеу, нақты сүзілу немесе ортақ диагноз |
| L-NMMA | Өзге тежегіш және ақуыз айналымы | ADMA-мен бірдей масса мен шектер |
| L-аргинин | Үлгідегі субстрат | NOS маңындағы қолжетімділік не қоспа пайдасы |
| Arg/ADMA | Екі плазма компонентінің теңгерімі | Бір шек астындағы міндетті зақым |
| ADMA/SDMA | Изомерлердің бөлек профилі | DDAH1, AGXT2, бауыр не бүйрек ақауының орны |
| Цитруллин | Ішек–бүйрек алмасуы және түрлі көздер | Тек DDAH1 не NOS жылдамдығы |
| Гомоцистеин | Біркөміртекті алмасу контексі | ADMA мөлшері не бәріне ортақ витамин сызбасы |
Аргинин тағамнан түседі және ағзада түзіледі. Ішек пен бауыр алмасуы ішу кезіндегі биожетімділікке әсер етеді; аргиназа пайдалану үшін бәсекелеседі. Цитруллин ішек–бүйрек осінде аргининнің алғы заты бола алады, бірақ ADMA-ны тікелей жоймайды.
Аргининосукцинатсинтетаза ASS1 цитруллин мен аспартатты біріктіріп, ATP-ты AMP пен пирофосфатқа дейін жұмсайды. Аргининосукцинатлиаза ASL кейін аргинин мен фумарат береді:
Тін мен ферментке тәуелді. Цитруллин кез келген жоғалудан қашып, eNOS субстратын міндетті көбейтеді деген артық. Schwedhelm және әріптестері (2008) 20 сау еріктіде апталық режимдерді қос соқыр айқаспалы зерттеумен салыстырды. Аргинин және кей NO көрсеткіші артты, бірақ еш режим FMD-ны бастапқыдан жақсартпады. Фармакокинетика пациенттің жүрек-қантамыр нәтижесін дәлелдемейді.
VINTAGE MI, Schulman және әріптестері (2006), ST көтерілген алғашқы инфаркттан кейін 153 пациентті алты айға L-аргинин не плацебоға бөлді. Тамыр қаттылығы мен лықсыту фракциясының күтілген пайдасы расталмады; аргинин тобында алты өлім, плацебода нөл болып, қабылдау тоқтады. Бұл инфаркттан кейін субстрат логикасын емге көшіруді шектейді. Тағамдық аргинин немесе цитруллин бәріне бірдей зиян деген емес, бірақ тек Arg/ADMA үшін автоматты қоспаны жоққа шығарады.
N-ацетилцистеин глутатион түзілуіне цистеин бере алады. Ол өзі синтезді катализдейтін фермент емес және барлық пациентте DDAH1 қалпына келтіретін әмбебап жол ретінде дәлелденбеген. Жасушалық редокс өзгерісі мен клиникалық қауіп азаюы бөлек нәтижелер.
Альфа-липой қышқылы мен тотықсызданған түрі тиол химиясында қарастырылады. Бос қоспа энергия ферментіне ковалентті бекіген липоил қалдығынан бөлек. Термодинамикалық мүмкіндік DDAH1 цистеиніне жеткілікті зат жеткізуді кепілдемейді. Фермент тотығу сызбасы ем дозасын анықтамайды.
Аскорбат кей модельде NOS кофактор ортасын сақтауға әсер етеді; токоферолдар липид тотығу тізбегін үзеді. Селен селенцистеин арқылы селенопротеиндерге, соның ішінде кей глутатионпероксидазаға кіреді, барлық антиоксиданттың бос металдық кофакторы емес. GPX субстрат пен орналасуда өзгеше. Бұл витамин–селен қоспасы ADMA-ны арнайы жояды немесе әр дозада қауіпсіз дегенді дәлелдемейді.
Фолат, B12 және B6 тамақ, ауру және көрсетіліммен бағаланады. Тапшылық пен артықтық бөлек; ұзақ жоғары B6 нейропатия туғызуы мүмкін. PLP-тәуелді AGXT2 не гомоцистеин байланысы бәріне бірдей жоғары дозалы кешенге негіз емес.
PPARγ сигналдары метаболизм мен экспрессияны өзгерте алады; кей жұмыстар ADMA-мен байланысын қарастырған. Телмисартан AT1-ді бөгейді әрі қосымша эксперименттік қасиеті бар; тиазолидиндиондар инсулин сезімталдығына әсер етеді. DDAH реттелуі туралы гипотеза ADMA жоғары болса оларды бәріне бірінші таңдауға айналдырмайды. Көрсетілім, қарсы көрсетілім және нәтиже нақты ауру мен препаратқа тиесілі.
Статиндер сәйкес топта LDL және жүрек-қантамыр қаупін азайтады. ADMA әсері зерттеу арасында өзгеше; тұрақты 20% барлық класқа міндетті емес. Жасушадағы DDAH1 не PRMT өзгерісі липид механизмі мен клиникалық сынақты алмастырмайды.
FXR-тәуелді бауыр алмасуы мен басқа транскрипциялық жолдар зерттеледі. Модельде DDAH1 өзгерту ADMA үшін FXR агонисіне клиникалық көрсетілім бермейді. Тін, экспозиция, қауіпсіздік және маңызды нәтиже деректері керек.
Ресвератрол, куркумин және полифенолдарға антиоксиданттық, қабыну және сигнал гипотезалары ұсынылған. Жасушалық не жануарлық нәтиже концентрация мен биожетімділікке тәуелді. Адамдағы әмбебап төмендеу пайызы немесе оқиғаның алдын алу дәлелденбейді. Комбинация жауапты компонентті анықтауды қиындатады; құрам, әрекеттесу және көтерімділік маңызды.
Ағын мен ығысу кернеуі эндотелий сигналын, eNOS, Akt және транскрипцияны реттейді. Қозғалыс бірнеше жүрек-қантамыр көрсеткішін жақсартады, бірақ ADMA өзгерісі топ пен араласуға байланысты. Бірдей аптадан соң 15–20% төмендеу міндетті емес. Жаттығудан DDAH2 экспрессиясы өсуі тікелей гидролизді дәлелдемейді.
Тамақ сапасы, жеткілікті ақуыз және микронутриент, темекіден бас тарту, метаболикалық факторды бақылау жалпы алдын алуда маңызды. Пайдасы толық ADMA арқылы өтуге тиіс емес. Жерорта теңізі үлгісі немесе кей өңделген өнімді азайту кепілді анализі бар стандартты «метиларгинин детоксы» емес.
Тағамдық нитрат NOS-ты жартылай айналып өтетін нитрат–нитрит NO жолын қолдайды. Ол өңделу, микробтық белсенділік және тін жағдайына тәуелді. Балама сигнал көзі ADMA-ны тікелей жоймайды. Әр eNOS ақауын толық өтейді немесе гипертензия емін алмастырады деуге болмайды.
Тәуліктік реттелу хронобиологияны қызықты етеді. Бірақ «таңертең субстрат, кешке антиоксидант» тәулік бойғы дәлелденген ADMA қорғанысы ретінде ортақ хаттама емес. Дәрі уақыты өз дерегі мен клиникалық мақсатына сүйенеді, қиялдағы молекулалық кезекке емес.
Жоғары нәтиже бүйрек, бауыр, қысым, липид, гликемия, қабыну және клиникамен бірге түсіндіріледі. Алдымен әдіс, референс, жағдай және мақсат анықталады. Күтпеген мән өздігінен қоспа жиынтығын не қажетті емді ауыстыруды негіздемейді.
| Клиникалық сұрақ | Шешімге пайдалы дерек | ADMA рөлі және шегі |
|---|---|---|
| Жалпы жүрек-қантамыр қаупі | Жас, қысым, темекі, липид, диабет, отбасылық және клиникалық тарих; валидтелген модель | Әмбебап ем шегі жоқ зерттеулік қосымша маркер |
| Бүйрек бұзылысы | Креатинин, есептік сүзілу, альбуминурия, себеп | Алмасуды көрсете алады, сатыны жеке анықтамайды |
| Кеуде ауыруы не декомпенсация | Қарау, ЭКГ, қабылданған маркер және көрсетілген бейнелеу | Тропонин, NT-proBNP және шұғыл бағалауды алмастырмайды |
| Нутриент тапшылығы | Тамақ, симптом, фактор және тиісті анализ | B6, фолат, B12 не антиоксидант тапшылығын автоматты дәлелдемейді |
| Араласуға жауап | Алдын ала анықталған клиникалық нәтиже, көтерімділік және валидтелген өлшем | Төмен ADMA жақсы болжамды дәлелдемейді |
Ағынға тәуелді кеңею мен пульстік толқын жылдамдығы хаттамаға, құралға, қысымға, жасқа және басқа жағдайға тәуелді. Бір FMD пайызы ADMA әрекетінің әмбебап шегі емес. Тамыр қаттылығы да себеп метаболитін анықтамайды. Қан талдауы, қызметтік тест және ем шешімінің байланысы бөлек валидацияны қажет етеді.
Бұл ADMA туралы баяндаушы ғылыми талдау; даулы механизмдер, құрылымдар және клиникалық нәтижелер 2026 жылғы 8 қазанда нысаналы тексерілді. Бастапқы библиографиялық жазбалар, қолжетімді аңдатпалар мен индекстелген бастапқы үзінділер, ашық RCSB беттері пайдаланылды. Кей толық мәтін қолжетімсіз болды; тиісті қорытынды ашық бастапқы жазба мен аңдатпаға сүйенеді.
Толық жүйелі іздеу, жеке GRADE бағасы, ресми сыртқы рецензия немесе клиникалық хаттаманы валидациялау жүргізілмеді. Сан, дизайн және атау тек жазба тексеруге мүмкіндік бергенде берілді; негізсіз әмбебап шек пен ем уәдесі алынды. Ең сенімді қорытынды ADMA-ның метилденген ақуыздан шығуы, DDAH1 тікелей гидролизі, AGXT2 балама жолы және NOS тежеуіне қатысты. Болжамдық құн, жергілікті компартмент және адамда ADMA-ны нысаналы өзгертудің пайдасы нақты популяция мен клиникалық зерттеуді талап етеді.
Массасы бірдей позициялық изомерлер, метилі бөлек орналасады. ADMA NOS-ты тікелей тежейді; SDMA әдеттегі тікелей тежегіш емес, бүйрекпен тығызырақ байланысты.
Қазіргі көпорталықты жұмыс тікелей гидролизді растамады. Оның биологиялық әсерін DDAH1 катализінен бөлу керек.
Бұл деректер әмбебап диагноз не ем шегін бермейді. Референс, зерттеулік шек және жеке қауіп бөлек ұғымдар.
Бір анализ қоспаны негіздемейді. Бәсекелік кинетика клиникалық пайдаға кепіл емес; VINTAGE MI-дің теріс нәтижесі мен қауіпсіздік сигналы маңызды.
Сәйкестік тексерілмей олай емес. Селективтік, матрица, калибрлеу, дайындау және нақты жиынтық не әдіс әсер етеді.
Маркер өзгеруі клиникалық жақсаруды өздігінен дәлелдемейді. Нақты араласу мен топтың нәтижесі зерттелуі керек.