Asimmetrik dimetilarginin: ADMA va tomir xavfi
ADMAning metillangan oqsildan kelishi, DDAH1 katalizi va DDAH2 chegaralari, AGXT2, arginin transporti va NOS ingibitsiyasi. Klinik aloqalar, o‘lchash va referens bilan davo chegarasi farqi.
ADMA — L-argininning organizmda hosil bo‘ladigan metillangan hosilasi, asimmetrik dimetilarginin. U azot oksidi sintazalarini, NOS, raqobatli tarzda tormozlay oladi va oqsil aylanishi, aminokislota tashilishi hamda endoteliy faoliyatini bog‘laydi. ADMA ayrim yurak-qon tomir, buyrak va metabolik kasalliklarda ko‘tariladi. Biroq biokimyoviy mexanizm, klinik natija bilan statistik bog‘liqlik va amaliy jihatdan foydali diagnostik test dalillarning turli bosqichlaridir.
ADMAni marker va kasallik jarayonining ehtimoliy ishtirokchisi sifatida o‘rganish uchun asos bor. Infuziya tajribalari uning miqdorini o‘zgartirish gemodinamikaga ta’sir qilishini, kuzatuvlar esa ba’zi natijalar bilan bog‘liqligini ko‘rsatadi. Bu bitta qon tahlili kasallik sababini tushuntiradi, shaxsiy xavfni aniq hisoblaydi yoki davolash rejasini belgilaydi degani emas. Plazmadagi natijani ma’lum hujayrada, NOS yaqinidagi erkin ADMA miqdoridan farqlash ayniqsa muhim.
ADMA, SDMA va monometilargininning kimyoviy farqi
Arginin yon zanjiri guanidino guruhi bilan tugaydi; bu halqa emas. Uning chekka azot atomlari metillanganda turli hosilalar paydo bo‘ladi. ADMAda ikki metil bir chekka azotda, simmetrik dimetilargininda, SDMA, har birida bittadan joylashgan. Ular formulasi teng, metillari boshqacha joylashgan pozitsion izomerlardir. L-NMMA, monometil-L-arginin, faqat bitta metilga ega.
| Birikma | Erkin asos formulasi | Molyar massa, g/mol | Muhim funksional farq |
|---|---|---|---|
| L-arginin | C₆H₁₄N₄O₂ | 174,20 | NOS va boshqa metabolik yo‘llar substrati |
| L-NMMA | C₇H₁₆N₄O₂ | 188,23 | Endogen NOS ingibitori va DDAH1 substrati |
| ADMA | C₈H₁₈N₄O₂ | 202,25 | NOS ingibitori; DDAH1 va AGXT2 orqali almashinadi |
| SDMA | C₈H₁₈N₄O₂ | 202,25 | Odatdagi bevosita NOS ingibitori emas; transport va buyrak faoliyati bilan bog‘liq |
Fiziologik pHda guanidino qism asosan musbat zaryadlangan. Metillanish vodorod bog‘i donorlarining mavjudligini, gidrofoblikni va oqsillar tomonidan tanilishni o‘zgartiradi; zaryadni shunchaki o‘chirib qo‘ymaydi. Teng massa teng ta’sir demak emas. Analitik usul ham izomerlarni ajratishi kerak.
ADMA va L-NMMA endotelial eNOS, neyronal nNOS va induksiyalanuvchi iNOSni tormozlay oladi. Ingibitsiya konstantalari izoforma, substrat va tajriba sharoitiga bog‘liq; bir Ki barcha to‘qimalarga tegishli universal konstanta emas. SDMAning ayrim modellarda arginin mavjudligi yoki yallig‘lanishga ta’siri bevosita raqobatli NOS ingibitsiyasidan alohida muhokama qilinadi.
Erkin arginin emas, oqsil tarkibidagi qoldiq metillanadi
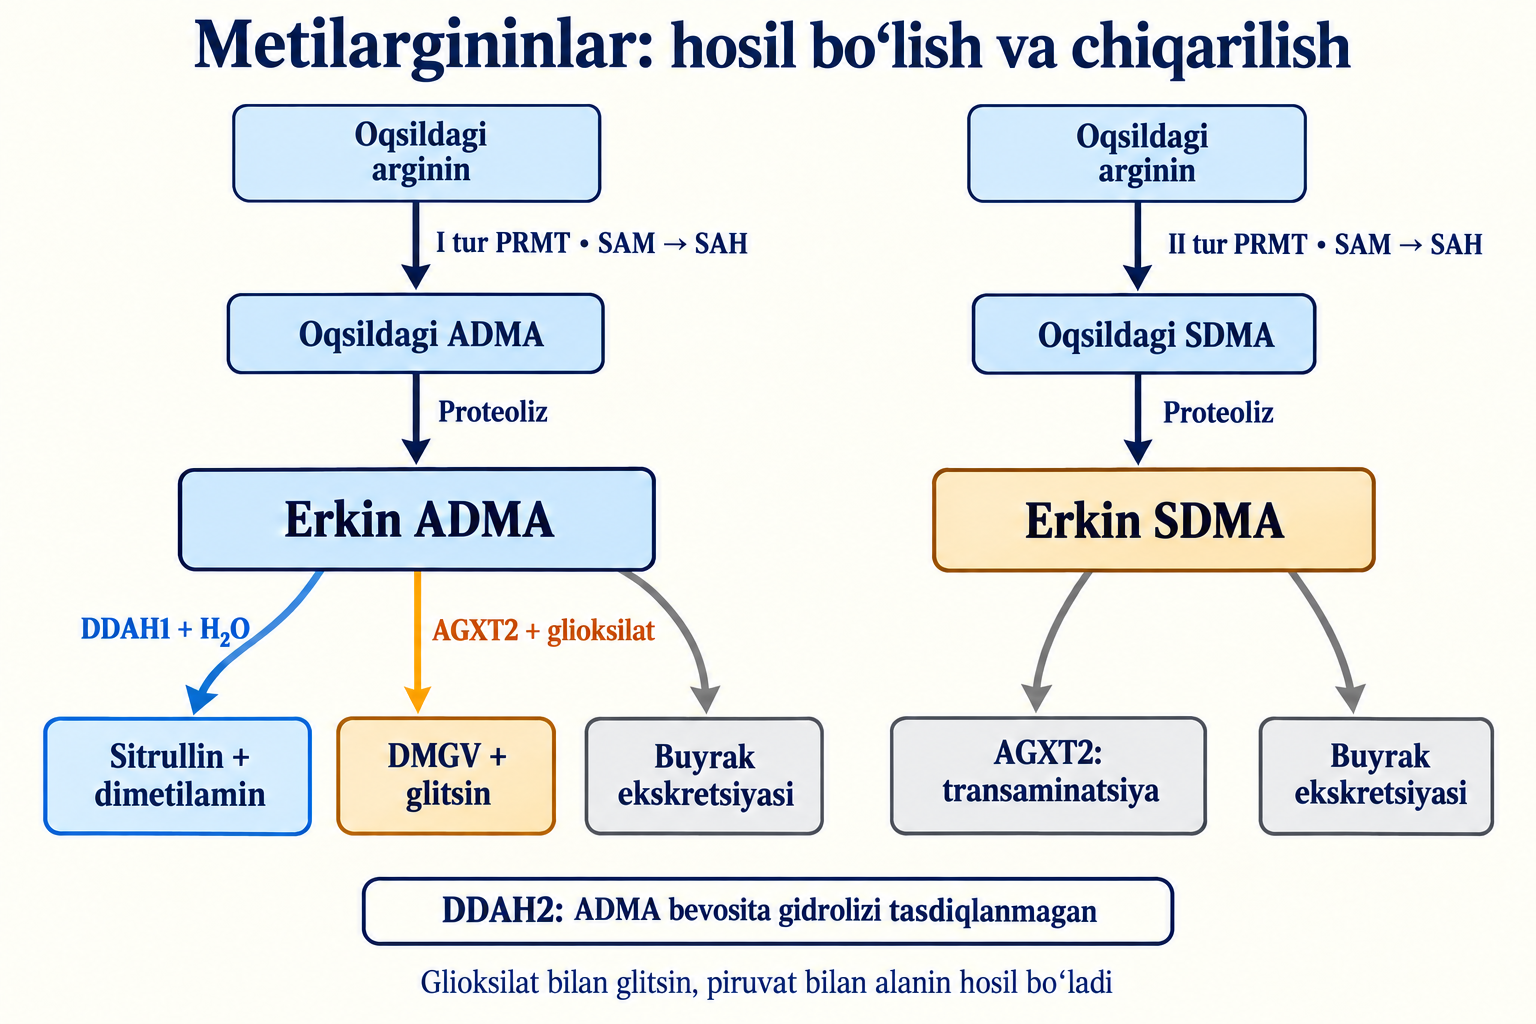
ADMAning asosiy manbai metillangan arginin qoldiqli oqsillarning parchalanishidir. Oqsil-arginin metiltransferazalari, PRMT, metilni S-adenozilmetionin, SAM, dan oqsil tarkibidagi argininga o‘tkazadi. Donor S-adenozilgomotsistein, SAH, ga aylanadi. Ovqat yoki plazmadagi erkin arginin bu yo‘l orqali bevosita erkin ADMAga aylantirilmaydi.
I tur PRMT avval monometillangan, keyin asimmetrik dimetillangan qoldiq hosil qiladi. PRMT1 shu turga kiradi, lekin I tur faqat PRMT1 emas: boshqa a’zolarning substrati va vazifasi ham bor. II tur, jumladan PRMT5 va PRMT9, monometillangan oraliq mahsulot orqali simmetrik dimetillanish beradi. PRMT7 monometillanish bilan tavsiflanadigan III turga kiradi (Zurita-Lopez va boshq., 2012); Yang va hamkasblar (2015) PRMT9ning II tur ekanini tasdiqladi. Oqsil ketma-ketligini tanishdagi farqlar barchaga bitta motivni belgilashga imkon bermaydi.
Metillanish oqsil aloqalari, RNK ishlanishi, transkripsiya, xromatin va signal komplekslarini boshqaradi. Bu normal fiziologiyaning bir qismi. Erkin ADMA miqdori PRMT ekspressiyasidan tashqari metillangan oqsil turlari, ularning sintezi va parchalanishi, transport va keyingi chiqarilishga ham bog‘liq.
SAM va metil guruhlari almashinuvi metillarning kelib chiqishini tushuntiradi. SAM ko‘payishi plazma ADMAni chiziqli belgilamaydi: SAM/SAH, ferment regulyatsiyasi, to‘qima va oqsil aylanishi aralashadi. Bir uglerodli va gomotsistein almashinuvi shu tizim bilan kesishadi, uni almashtirmaydi.
Proteoliz va erkin ADMA paydo bo‘lishi
Ubikvitin–proteasoma tizimi ko‘plab hujayra ichki oqsillarini parchalaydi. Proteasoma peptid bo‘laklarini beradi; keyingi peptidazalar aminokislotalar va metilargininlarni ajratadi. Lizosomal parchalanish va autofagiya ham qatnashadi: yetkazilgan oqsil va organellalar gidrolazalar, jumladan katepsinlar bilan buziladi.
Tez proteoliz oldingi moddalar oqimini oshirishi mumkin, ammo erkin konsentratsiya hosil bo‘lish va yo‘qotilish muvozanatiga bog‘liq. Yallig‘lanish, katabolizm, sepsis va og‘ir kasalliklar ekspressiya, organ faoliyati, transport va taqsimlanish hajmini birgalikda o‘zgartiradi. Har qanday oqsil parchalanishi tezlashuviga bir xil ADMA o‘sishini taxmin qilib bo‘lmaydi.
Achan va hamkasblar (2003) insondagi metabolizm va infuziya tadqiqotida kuniga taxminan 300 µmol ADMA hosil bo‘lishini, shundan 250 µmol atrofida DDAHga bog‘liq almashinishini baholadi. Bu ma’lum sharoitdagi tarixiy baho, har bir inson uchun belgilangan sutkalik norma emas. Molyar massa bo‘yicha 300 µmol taxminan 60,7 mg; kunlik oqim plazmada bir vaqtda mavjud miqdor emas.
Hujayraviy zaxirani muvozanat bilan ifodalash mumkin:
A — tanlangan bo‘limdagi erkin ADMA miqdori, P — proteolizdan hosil bo‘lish, v — metabolik tezlik, J — membrana oqimlari. Barcha hadlar vaqtga nisbatan modda miqdori birligida bo‘lishi kerak. Konsentratsiya uchun hajm hisobga olinadi. Plazmada to‘qimadan chiqish, taqsimlanish va ekskretsiya ham kerak; hujayradan eksport ADMAni organizmda yo‘q qilmaydi.
Doimiy P va chiziqli kA chiqarilishli juda sodda modelda turg‘un miqdor P/k. k 30% kamayganda u 1/0,7, taxminan 1,43 baravar oshadi, avtomatik ikki–to‘rt baravar emas. Nochiziqlilik, boshqa yo‘llar va qayta aloqa haqiqiy javobni o‘zgartiradi. Model va sharoitsiz universal yarim chiqarilish davri yoki to‘planish karrasi berilmaydi.
Transport: plazma NOS atrofidagi muhitni ko‘rsatmaydi
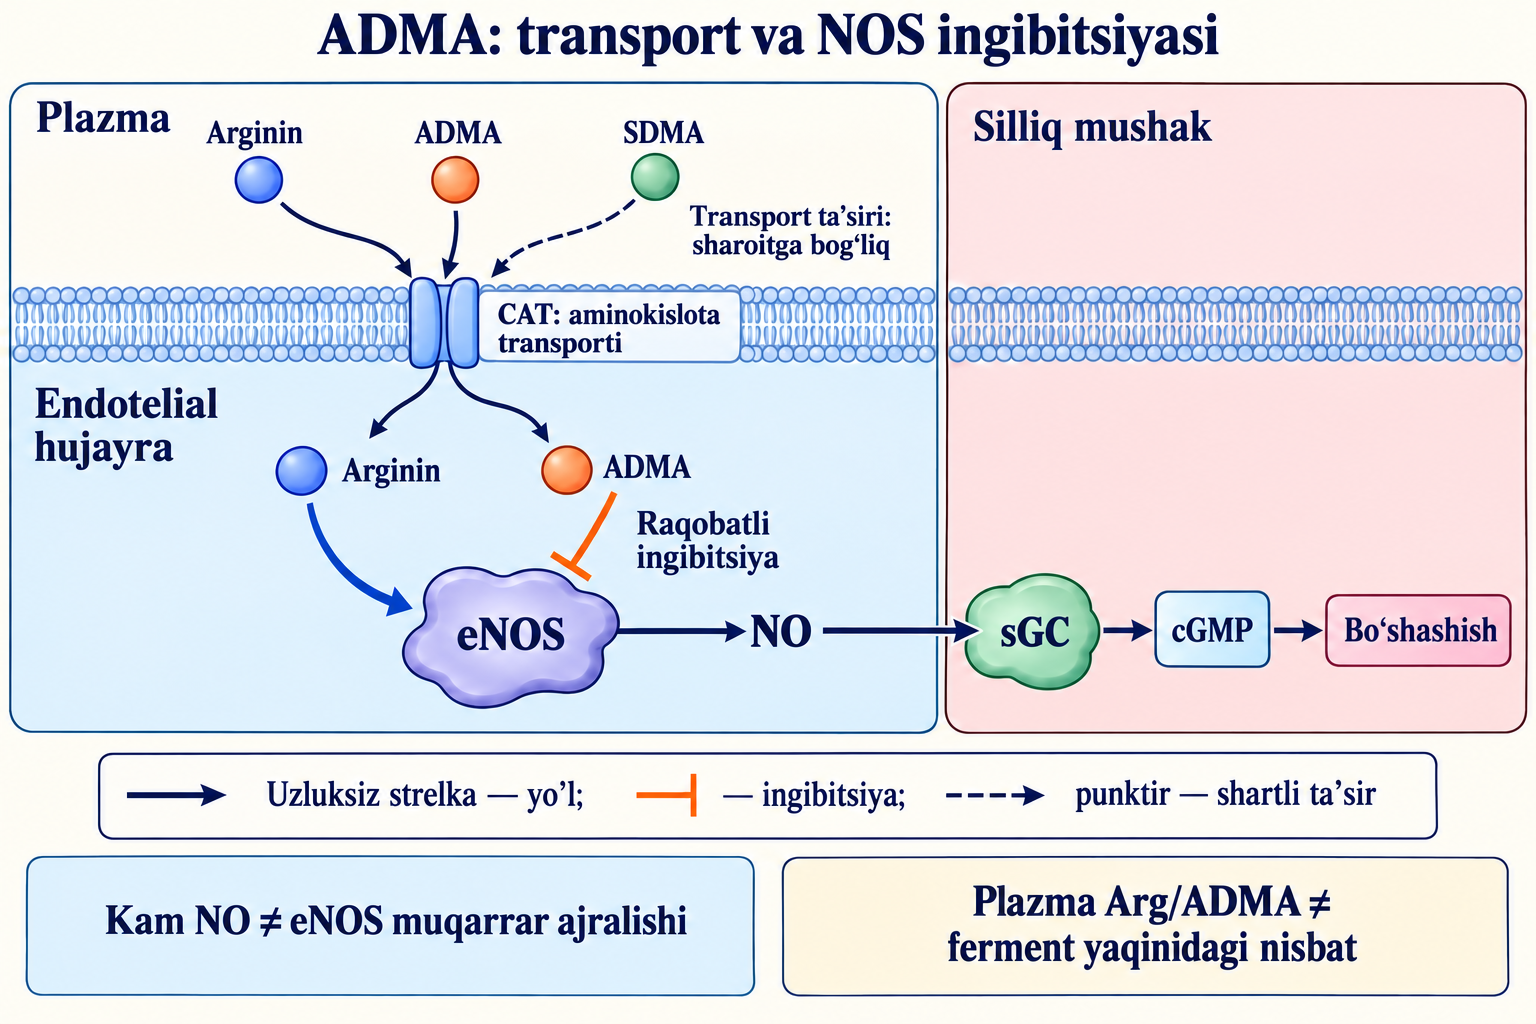
Kation aminokislotalarni y⁺ tizimi oqsillari, jumladan SLC7A1 kodlaydigan CAT1 tashiydi. CAT2A va CAT2B bir SLC7A2 genining variantlari; CAT3 SLC7A3 tomonidan kodlanadi. Ularning to‘qimaviy ekspressiyasi va kinetikasi farqli. CAT1 ko‘p hujayralar, shu jumladan endoteliy uchun muhim; CAT2 variantlari jigar almashinuvi va faollashgan hujayra javoblarida qatnashadi.
Transport asosan Na⁺ga bog‘liq emas, membrananing ikki tomonidagi elektrokimyoviy sharoit va konsentratsiyaga bog‘liq. Ichki substrat tashqisining kirishini tezlatadigan transstimulyatsiya bo‘lishi mumkin. Ammo har sharoitda bir argininni bir ADMAga majburiy almashish deyish ortiqcha soddalashtirish.
Arginin va metilargininlar tashuvchilar bilan ta’sirlashadi, biroq transport raqobati NOSga bog‘lanish bilan teng emas. SDMA ayrim sharoitda arginin mavjudligini cheklashi mumkin, lekin ADMAga teng bevosita ingibitor emas. Submikromolyar plazma miqdorini juda katta transport konkurenti ishlatilgan tajribaga baholamasdan ko‘chirish mumkin emas.
Arginin paradoksi umumiy hujayra arginini Km dan oshsa ham qo‘shimcha substrat ba’zan NOni o‘zgartirishini anglatadi. Bo‘limlarga ajralish, eNOSga yaqin transport komplekslari, metilarginin raqobati va sitrullinni qayta ishlash ehtimoliy izohlar. Hujayra ekstraktidagi umumiy arginin faol markazga yetadigan substratni aniq bermaydi.
DDAH1 va DDAH2: kataliz dalillari farqi
Dimetilarginin dimetilaminogidrolaza DDAH1 ADMA va L-NMMAni gidrolizlaydi. ADMA L-sitrullin va dimetilamin, L-NMMA esa L-sitrullin va metilamin beradi. SDMA odatiy substrati emas. DDAH — ferment, transkripsiya omili emas.
Eski sxemalar DDAH1ni ko‘proq neyronal NOS, DDAH2ni endotelial NOS bilan bog‘lab, ikkalasini teng ADMA gidrolazasi deb ko‘rsatgan. Bunday qat’iy ajratish to‘qimalarga tarqalish va zamonaviy katalitik ma’lumotni to‘liq aks ettirmaydi.
Ragavan va hamkasblar (2023) ko‘p markazli ishda rekombinant oqsillar, hujayra aralashuvlari va sichqon modellarini taqqosladi. Mos keluvchi natijalar DDAH2ning ADMAni metabolizlash qobiliyatini tasdiqlamadi, DDAH1 esa faol edi. Shuning uchun eski hujayraviy ishlarda DDAH2 o‘zgartirilgach ADMA pasayishi aynan shu oqsilning bevosita gidrolizini isbotlamaydi.
DDAH2ning biologik ahamiyati saqlanadi: tomir qayta qurilishi, angiogenez, signal va metabolik jarayonlarga bog‘langan. Ta’siri bevosita ADMA almashinuvidan mustaqil yoki boshqa tizim vositasida bo‘lishi mumkin. Nom reaksiyani kafolatlamaydi; genetik o‘zgarishdan keyingi metabolit natijasi kimyoni o‘zi belgilamaydi. Katalitik o‘lchov, boshqa fermentlar nazorati va mos model kerak.
DDAH1 tuzilishi va kimyoviy mexanizmi
DDAH markaziy katalitik soha atrofida takrorlanuvchi α/β-arxitekturaga ega. Sistein va boshqa qoldiqlar nukleofil hujum, kislota–asos almashishi va faol markaz geometriyasini ta’minlaydi. Sistein guanidino uglerodga hujum qilib kovalent oraliq kompleks hosil qiladi; metillangan amin ajralishi va keyingi gidroliz sitrullin beradi, fermentni tiklaydi. Uni izohsiz oddiy karbonil tioefiri deb atash to‘g‘ri emas.
Inson DDAH1 qoldiqlari boshlang‘ich metionindan sanalganda Cys274, His173 va Asp127 deb belgilanadi; strukturaviy ishlarda bir qoldiqqa siljigan raqam ham uchraydi. Uni bakterial raqam bilan aralashtirish yoki inson aspartatini bakterial glutamat bilan almashtirish mumkin emas.
1H70 yozuvi Murray-Rust va hamkasblar (2001) bilan bog‘liq Pseudomonas aeruginosa DDAHning C249S mutanti va sitrullinga tegishli. Bu inson oqsili emas. Inson sitrullin kompleksi Leiper va hamkasblar (2007) bilan bog‘liq 2JAI da mavjud. Tur, mutatsiya va raqamlash tuzilish xulosalarini ko‘chirishda muhim.
Soddalashtirilgan kinetika:
[A] — reaksiyadagi ADMA, Km — muayyan preparat va sharoit parametri, Vmax — belgilangan faol ferment miqdorida chegaraviy tezlik. Km dan ancha pastda bog‘lanish deyarli chiziqli. Bir rekombinant preparatning Km, kcat yoki pH javobi har to‘qimadagi chiqarilishni bermaydi; faol miqdor, oksidlanish, substratga kirish va muqobil almashinuv muhim.
Redoks boshqaruvi va qayta aloqa chegaralari
Katalitik sistein DDAH1ni ayrim tiol modifikatsiyalariga sezgir qiladi. Leiper va hamkasblar (2002) S-nitrozillanish va faollik o‘zgarishini tajribada ko‘rsatgan. S-nitrozotiol hosil bo‘lishiga mos nitrozlovchi kimyo zarur; har NO molekulasi istalgan tiol bilan majburiy bevosita reaksiyaga kirishmaydi.
Oksidlanish sulfen shakli, glutation bilan aralash disulfidlar va boshqa holatlardan o‘tishi mumkin. Ba’zilari hujayra qaytaruvchi tizimlari orqali tiklanadi; chuqur oksidlanishni qaytarish qiyin bo‘lishi mumkin. Yo‘l, tezlik va oqsil parchalanishiga oqibat o‘lchanadi. Birinchi bosqichning stexiometrik misoli:
Bu hamma DDAH1 aynan shunday yoki har RSOH qaytmas ekanini anglatmaydi. Bitta peroksinitritdan tiol darhol sulfonatga aylanib, birga nitrit ham beradigan muvozanatsiz tenglama yaramaydi.
Oksidlovchi stress DDAH1 faoliyatini kamaytirishi, yuqori ADMA NOni cheklashi mumkin. Ma’lum sharoitda salbiy qayta aloqa saqlanadi. Tizim geometrik o‘sishga majbur emas: AGXT2, transport, organ metabolizmi va oqsil tiklanishi bor. Oksidlangan LDL, gomotsistein, sitokin yoki yuqori glyukoza ta’siri modelga bog‘liq; barcha to‘qimadagi barcha DDAH bir xil tormozlanishini isbotlamaydi.
GPX4 va membrana lipidlarining peroksidlanishi qo‘shni redoks mexanizmini tushuntiradi. GPX4 lipid gidroperoksidlarini qaytaradi; bu yo‘l arginin mavjudligi va ADMAning fermentativ almashinuviga oid. Stress orqali kesishish ularni almashtiriladigan qilmaydi va GPX4 o‘sishi ADMAni majburiy normallashtirishini ko‘rsatmaydi.
AGXT2: mitoxondrial yo‘l va turli akseptorlar
Alanin-glioksilat aminotransferaza 2, AGXT2, B6ning faol kofermenti piridoksalfosfatga, PLP, bog‘liq mitoxondrial ferment. Buyrak va jigarda ifodalanadi, substrat doirasi keng; metilarginindan tashqari β-aminoizobutirat va boshqa moddalar muhim.
AGXT2 guanidino guruhni gidrolizlamay, transaminatsiya qiladi. ADMA α-amino guruhini glioksilatga bersa, tegishli α-ketokislota, odatda DMGV, va glitsin hosil bo‘ladi. Akseptor piruvat bo‘lsa, alanin paydo bo‘ladi:
Bular turli akseptorli muqobil reaksiyalar; ikkala aminokislotani birga beradigan ketma-ketlik emas. SDMA ham AGXT2 orqali mos simmetrik α-ketohosilaga aylanishi mumkin. Glitsin DDAH1 mahsuloti emas. Glioksilat reaksiyasida bo‘lishi glitsin ichish ADMAni tezroq chiqarishini isbotlamaydi.
Rodionov va hamkasblar (2010) inson AGXT2sini eksperimental tizimlarda o‘rganib, ADMA pasayishi va NO hosil bo‘lishini uning tormozlashidan himoyani ko‘rsatdi. Bu yo‘l mavjudligini qo‘llaydi, har insonda chiqarilishning universal ulushini belgilamaydi. Gen variantlari bir nechta substratni o‘zgartiradi; SDMA yoki β-aminoizobutiratga bog‘lanish ADMA yoki klinik natijaga tasdiqlangan ta’sir emas.
DMGV biologik suyuqliklarda o‘lchanadi va metabolik marker sifatida tekshiriladi. U barcha odamlarda ma’lum tezlikda yo‘qoladigan shunchaki xavfsiz chiqindi emas. B6 yetarliligi PLP reaksiyasiga zarur, ammo dozani ko‘paytirish AGXT2 yoki klinik xavf yaxshilanishini kafolatlamaydi.
Kittel va hamkasblar (2014) 400 sog‘lom ko‘ngillini tekshirdi: AGXT2 rs37369 (Val140Ile) va rs16899974 (Val498Leu) variantlari SDMA va/yoki β-aminoizobutiratga ta’sir qildi, ammo hech biri plazma ADMAni o‘zgartirmadi. Fermentning genetik o‘zgarishi avtomatik yuqori ADMA yoki klinik xavf degani emas.
Buyrak va jigar: almashinuv va ekskretsiya
ADMAning bir qismi buyrakdan chiqadi, katta qismi fermentlar orqali metabolizlanadi. Buyrak faqat filtrlash emas, metilarginin almashinuvida ham qatnashadi; jigar ham ADMAni tutib, o‘zgartira oladi. Surunkali buyrak kasalligida o‘sish faqat glomerulyar filtratsiya kamayishidan emas.
SDMA buyrak bilan yaqinroq bog‘liq va filtratsiya pasayganda ko‘pincha oshadi. Ammo AGXT2 almashinuvi uni mutlaqo o‘zgarmaydigan va doim 95% bitta yo‘ldan chiqariladigan modda deyishga imkon bermaydi. Hosil bo‘lish, taqsimlanish va shaxsiy sharoit ta’sir qiladi. Inson tibbiyotida standart buyrak bahosini avtomatik almashtirmaydi; veterinariya mezonlari odamlarga ko‘chirilmaydi.
Buyrak buzilishi uremik muhit, oqsil aylanishi, yallig‘lanish va ferment faolligini birga o‘zgartiradi. Bu ADMA to‘planishini endotelial buzilish bilan bog‘laydi. Tomirning buyrak perfuziyasiga ta’siri munosabatni ikki tomonlama qiladi. Bir doimiy o‘sish karrasi kasallik bosqichini aniqlamaydi; ADMA/SDMA jigar yoki buyrakdagi metabolik blokni o‘zi topmaydi.
NOS raqobatli ingibitsiyasi va arginin paradoksi
Sodda modelda arginin va ADMA fermentga bog‘lanish uchun raqobatlashadi. Dastlabki tezlik:
[S] — mavjud L-arginin, [I] — ADMA, Ki — shu tizim konstantasi. Ko‘rinma Km oshadi, yetarli substratda Vmax sodda modelda o‘zgarmaydi. Bu tirik hujayradagi maksimal NO saqlanishi kafolati emas. Transport, NOS miqdori va holati, kofaktor, kislorod, qaytaruvchi ekvivalent va NO sarfi aralashadi.
NOS L-argininni N-gidroksi-L-arginin orqali NO va sitrullinga aylantiradi. Elektronlar NADPHdan flavin markazlari orqali gemga o‘tadi; kofaktorlar, jumladan tetrahidrobiopterin, BH4, mos holatda bo‘lishi zarur. eNOS uchun kalsiy, kalmodulin, fosforlanish va joylashuv muhim. Butun siklni ADMA kislorodning temirga yo‘lini yopadi yoki BH4ni majburiy siqadi deb izohlash yetarli emas.
Ko‘proq arginin ayrim sharoitda raqobatni susaytiradi, lekin qo‘shimcha foydasini isbotlamaydi. Transport cheklangan, arginaza va boshqa yo‘llar substratni ishlatadi, mahalliy nisbat plazmadan farq qiladi. NO metabolitlari kamaygan infarkt yoki o‘limga teng emas.
NO kamayishi va NOS ajralishi bir xil emas
Samarali eNOSda elektron oqimi NO sinteziga ishlaydi. BH4 kamligi yoki oksidlanishi, tiol o‘zgarishi va boshqa vaziyat oqimning bir qismini superoksidga yo‘naltirishi mumkin; bu NOS reaksiyasining ajralishi deb ataladi. ADMA endoteliy buzilishi muhitiga qatnashadi, ammo ingibitsiya har bir fermentni avtomatik superoksid manbasiga aylantirmaydi.
Ba’zi sharoitda ingibitor NO bilan birga NOSga bog‘liq ayrim radikal oqimni ham kamaytiradi. «ADMA joyni egalladi — barcha eNOS darhol superoksid beradi» universal emas. Dalil uchun o‘lchov va NADPH oksidazalar hamda mitoxondriya kabi boshqa manbalarni nazorat qilish kerak.
NO superoksid bilan reaksiyaga kirishadi:
Peroksinitrit paydo bo‘lishi NO mavjudligini ham kamaytiradi. BH4 va oqsil oksidlanishi buzilishni kuchaytirishi mumkin, ammo joy, himoya tizimi va raqobatli reaksiyaga bog‘liq. Plazma ADMA endotelial superoksid, BH4 yoki peroksinitrit tezligini bevosita o‘lchamaydi.
Tomir signalizatsiyasi va gemodinamika
NO silliq mushakda eruvchan guanilat siklazani faollashtirib cGMPni oshiradi va tomir bo‘shashishiga ta’sir qiladi. Trombosit, leykosit–endoteliy aloqasi va qayta qurilishda qatnashadi. Kam mavjudlik qarshilikni oshirishi va himoya vazifasini o‘zgartirishi mumkin. Biroq simpatik tizim, endotelin, prostanoid, mahalliy metabolit va boshqa yo‘llar ham boshqaradi.
Achan va hamkasblar (2003) 12 sog‘lom erkakda randomizatsiyalangan, ikki tomonlama ko‘r infuziya tajribasini o‘tkazdi. ADMA plaseboga qaraganda yurak tezligi, yurak chiqishi, o‘rtacha bosim va tizimli qarshilikni o‘zgartirdi. Bu belgilangan sharoitda inson gemodinamikasiga bevosita ta’sir dalili, tabiiy yuqori ADMAning umrbod ta’siri yoki bir tahlildan shaxsiy xavf chegarasi emas.
Buyrak va miya mikroaylanishi NOga sezgir, lekin faqat unga bog‘liq emas. Bitta konsentratsiyadan har odamda arteriola yoki miya oqimi bir xil pasayishini chiqarib bo‘lmaydi. NO, bosim va mahalliy avtoregulyatsiya organlarga turlicha ta’sir qiladi.
Endotelial qarish va yallig‘lanish
Scalera va hamkasblar (2004) qayta-qayta ADMA berilgan endotelial hujayra kulturasini tekshirdi. Qarish bilan bog‘liq β-galaktozidaza va telomer qisqarishi kuchaydi, telomeraza faolligi pasaydi; redoks belgilar va MCP-1 hamda interleykin-8 ajralishi o‘zgardi. Bu tajribaviy fenotip, plazma bilan odam tomirining biologik yoshini aniq o‘lchash emas.
DNK shikastlanishiga javob, sikl to‘xtashi va qarigan hujayra sekretor fenotipi surunkali stressni tushunishga yordam beradi. Bitta tajribaga barcha p53/p21 bosqichi, SASP komponentlari va insondagi aniq telomeraza yo‘qolishini bevosita o‘lchovsiz yuklab bo‘lmaydi. Kultura tomirdan qo‘shni hujayra, oqim, tiklanish va ta’sir muddati bilan farq qiladi.
Yallig‘lanish aloqasi ADMAni NF-κB yoki monosit jalb etilishining yagona sababi qilmaydi. Yallig‘lanish ADMA o‘zgarishidan oldin yoki umumiy kasallikning qismi bo‘lishi mumkin. Aralashuv yo‘nalishi va boshqa mexanizm nazorati muhim.
Yurak-qon tomir tadqiqotlari nimani ko‘rsatadi
Natija guruh, yakuniy ko‘rsatkich va metodga bog‘liq. Kasalligi allaqachon bor bemorda yuqori ADMA umumiy aholiga qaraganda boshqa prognostik qiymatga ega bo‘lishi mumkin. Eng yuqori va eng past uchdan birni solishtiruvchi xavf nisbati shaxsning mutlaq ehtimoli emas.
| Birlamchi ish | Dizayn va guruh | Natija ma’nosi | Chegara |
|---|---|---|---|
| Schulze va boshq., 2006, CARDIAC | Ko‘p markazli holat–nazorat: 131 koronar holat va 131 mos nazorat | Mavjud koronar kasallik bilan bog‘liqlik | Prospektiv dializ guruhi yoki davolash sinovi emas |
| Schnabel va boshq., 2005, AtheroGene | Prospektiv koronar kuzatuv; ADMA 1874 ishtirokchida o‘lchangan | Boshlang‘ich yuqori miqdor yurak-qon tomir o‘limi yoki o‘limsiz infarkt bilan bog‘liq | Universal chegara bermaydi |
| Böger va boshq., 2009, Framingham | 3320 kishi, taxminan 10,9 yil | ADMA va Arg/ADMA umumiy o‘limga bog‘liq | ADMA, arginin va nisbat yangi yurak-qon tomir kasalligi bilan bog‘lanmagan |
| Tang va boshq., 2008 | Surunkali sistolik yetishmovchilikli 132 bemor | Metilargininlar diastolik belgiga, ADMA salbiy natijaga bog‘liq | Kichik maxsus guruh; ADMAga qarab davolash foydasini isbotlamaydi |
| Dückelmann va boshq., 2008 | O‘tkir dekompensatsiyali 118 bemor | ADMA keyingi voqealarni ajratmadi; NT-proBNP informativ edi | Marker qiymati klinik vaziyatga bog‘liq |
AtheroGene yuqori va past uchdan bir uchun HR 2,48, 95% IO 1,52–4,06 bergan; qo‘shimcha modellarda bog‘lanish saqlangan. Bu tadqiqot ichidagi solishtirish, «ADMA 0,7 dan oshsa har kimning xavfi ikki baravar» qoidasi emas. Framinghamda umumiy o‘lim uchun tuzatilgan HR bir standart og‘ishga 1,21, 95% IO 1,07–1,37 edi, ammo yangi yurak-qon tomir kasalligi bilan aloqa yo‘q edi. Turli natijalarni bitta universal bashoratga birlashtirmaslik kerak.
Koronar kasallik, tomir aralashuvi yoki yetishmovchilikdagi ijobiy ma’lumot marker tadqiqotini qo‘llaydi. Ular ADMA troponin, NT-proBNP yoki ko‘krak og‘rig‘i uchun qabul qilingan tekshiruvni almashtiradi demaydi. Amaliy kiritish qayta olinuvchanlik, tashqi validatsiya, modelga qo‘shimcha qiymat va bemorga foydali qaror o‘zgarishi dalilini talab qiladi.
Yurak, buyrak va miya: aloqador, ammo turli oqibatlar
Yurak yetishmovchiligida NO signali pasayishi tomir yuki, miokard bo‘shashishi va o‘pka qarshiligiga ta’sir qilishi mumkin. cGMP, kalsiy va qisqaruvchi oqsil yo‘llari aloqani biologik asoslaydi. Ammo har diastolik buzilishni ADMAning SERCA2aga bevosita ta’siri bilan izohlash yoki barcha shaklda ikki–uch baravar o‘sish taxmin qilish to‘g‘ri emas. Buyrak, davolash, og‘irlik va hamroh kasalliklar ta’sir qiladi.
Buyrak kasalligida ADMA buzilgan almashinuvni aks ettirishi va endotelial buzilishda qatnashishi mumkin. Natija aloqasi bosim, suyuqlik, lipid, anemiya, mineral almashinuv va sabab xavfini yo‘q qilmaydi. Laborator pasayish bu natijalar yaxshilanganini ko‘rsatmaydi.
nNOS va eNOS asab signali va neyrovaskulyar bog‘lanishda qatnashadi. Plazma neyron yoki miya endoteliyidagi miqdor emas. Pikula va hamkasblar (2009) Framinghamda ADMAni ayrim MRT-tomir shikasti belgilari bilan bog‘ladi. Kuzatuv u bevosita oq modda zarari, glimfatik transport buzilishi yoki muayyan inson demensiyasini keltirishini isbotlamaydi.
Insulinga qarshilik, giperglikemiya va gomotsistein
Stühlinger va hamkasblar (2002) ADMA bilan insulin orqali glyukoza chiqarilishining buzilishi orasida aloqa topdi. Bir qismda farmakologik sezgirlik yaxshilanishi ADMA pasayishi bilan birga kechdi. Bu metabolik va tomir yo‘llari kesishuviga mos, lekin har odamda sabab yo‘nalishini belgilamaydi va mustaqil diabet mezoni yaratmaydi.
Yuqori glyukoza modelda reaktiv kislorod, PKC, DDAH1 ekspressiyasi yoki faolligi va boshqa jarayonlarni o‘zgartiradi. DDAH1 erkin ADMA sintezini boshlovchi transkripsiya omili emas, fermentligicha qoladi. Oqsil metillanishi, parchalanishi va chiqarilish kamayishi qatnashishi mumkin. Buyrak va davolash farqni oshiradi; diabet hammada ADMAni bir xil oshirmaydi.
Gomotsistein metionin sikli, redoks muhit va tomir ko‘rsatkichlari bilan bog‘liq. Metionin yuklash tajribasi ADMA va endoteliy o‘zgarishini ko‘rsatgan, lekin bu odatiy ovqat emas. Folat va B12 remetillanish, B6 transsulfuratsiya va boshqa PLP reaksiyalariga qatnashadi. Tasdiqlangan tanqislikni tuzatish o‘z foydasiga ega; gomotsistein pasayishi ADMA me’yorlashuvi yoki hodisalar oldini avtomatik isbotlamaydi.
O‘lchash: xromatografiya, mass-spektrometriya va ELISA
Suyuqlik xromatografiyasi fluoressent yoki mass-spektrometrik deteksiya bilan hamda immunotahlil ishlatiladi. Validatsiyalangan LC-MS/MS arginin va metilargininlarni birga o‘lchay oladi; selektivlik, kalibratsiya, matritsa va aniqlik tasdiqlanadi. Teng massa sabab umumiy prekursor signali ADMA va SDMAni ajratmaydi.
Ajratish va mahsulot ionlari usulga mos bo‘lishi kerak. ADMAning m/z 203→46 atrofidagi o‘tishi dimetilammoniy, SDMAning 203→172 signali esa neytral bo‘lak yo‘qolishini ko‘rsatishi mumkin; «massasi 172 metilammoniy» emas. Bu universal asbob sozlamasi emas. Izotopli ichki standart yo‘qotish va matritsani hisoblashga yordam beradi, validatsiyani bekor qilmaydi.
Derivatizatsiya usulga bog‘liq, barcha LC-MS/MS uchun shart emas. Martens-Lobenhoffer va Bode-Böger ta’riflagan HILIC har o‘lchovda butil efiri zarur degan gapga muqobil. Miqdoriy aniqlash chegarasi, variatsiya koeffitsienti va vaqt aniq protseduraga xos, ADMA testining o‘zgarmas xususiyati emas.
Raqobatli ELISA katta tadqiqotga qulay, lekin antitana, tayyorlash, kesishuvchi reaktivlik va matritsaga bog‘liq. Xromatografiyaga nisbatan siljishni barcha kit uchun bitta foizga tuzatib bo‘lmaydi. Juda ko‘p miqdordagi boshqa modda bilan kuchsiz reaksiya ham muhim bo‘lishi mumkin; kitda o‘lchanadi. Platformalarni bir chegara jadvali bilan solishtirishdan oldin moslik tekshiriladi.
Birlik, namuna turi, saqlash, metod va laboratoriya referensi kerak. Takroriy tahlilda bir validatsiyalangan metod afzal. Vaqt, ovqat, o‘tkir kasallik va dori kontekstni o‘zgartiradi, ammo tasdiqlangan sirkadiyal davolash yoki universal namuna soatini yaratmaydi.
Referens oralig‘i kasallik chegarasi emas
Schwedhelm va hamkasblar (2009) Framinghamdagi klinik tomir kasalligi, gipertoniya, diabet yoki semizliksiz 1126 chekmaydigan kishida LC-MS/MS referensini belgiladi. O‘rtacha 0,52 µmol/L, standart og‘ish 0,11; 2,5 va 97,5 persentil chegaralari 0,311 va 0,732 µmol/L.
Bu tanlangan guruhning aniq metoddagi taqsimlanishi; optimal, kasallik oldi, og‘ir xavf yoki majburiy qo‘shimcha toifalari emas. Oraliqdan chiqish shart kasallik, ichida qolish to‘liq himoya degani emas. Yosh, kasallik, metod va savol universal shkaladan muhimroq.
Arg/ADMA bir xil birlikda hisoblanadi:
Nisbat o‘lchovsiz; eNOS faol markazidagi balansni o‘lchamaydi. 100 dan past natija muqarrar ajralish emas. Boshqa tadqiqot indeksi argininning global biologik mavjudlik nisbati, Arg/(ornitin+sitrullin), metabolik mahsulotlarni qamraydi. Nom, formula va ma’noni aralashtirmaslik kerak.
| Ko‘rsatkich | Tadqiqot savoli | Yakka holda belgilamaydigan narsa |
|---|---|---|
| ADMA | Ingibitor hosil bo‘lish va yo‘qolish balansi | Sabab, ajralish darajasi yoki shaxsiy davolash |
| SDMA | Metilarginin va buyrak faoliyati | Bevosita NOS tormozi, aniq filtratsiya yoki universal tashxis |
| L-NMMA | Boshqa ingibitor va oqsil aylanishi | ADMAga teng massa va chegaralar |
| L-arginin | Namunadagi substrat | NOS yaqinidagi mavjudlik yoki qo‘shimcha foydasi |
| Arg/ADMA | Ikki plazma komponenti balansi | Bir chegarada majburiy shikast |
| ADMA/SDMA | Izomerlar profilidagi farq | DDAH1, AGXT2, jigar yoki buyrak nuqsoni joyi |
| Sitrullin | Ichak–buyrak almashinuvi va turli manbalar | Faqat DDAH1 yoki NOS tezligi |
| Gomotsistein | Bir uglerodli almashinuv | ADMA miqdori yoki bir xil vitamin rejasi |
Arginin va sitrullin: substrat gipotezasi chegaralari
Arginin ovqatdan keladi va endogen hosil bo‘ladi. Og‘iz orqali mavjudligi ichak va jigar almashinuviga bog‘liq; arginaza foydalanishda raqobat qiladi. Sitrullin ichak–buyrak yo‘lida arginin oldingi moddasi bo‘lishi mumkin, ADMAni bevosita yo‘q qilmaydi.
Argininosuksinat sintetaza, ASS1, sitrullin va aspartatni ATPni AMP hamda pirofosfatgacha sarflab birlashtiradi. Argininosuksinat liaza, ASL, arginin va fumarat beradi:
To‘qima va fermentga bog‘liq. Sitrullin barcha yo‘qotishdan qochib eNOS substratini kafolatli oshiradi deyish ortiqcha. Schwedhelm va hamkasblar (2008) 20 sog‘lom ko‘ngillida bir haftalik rejimlarni ikki tomonlama ko‘r, krossover usulda solishtirdi. Arginin va ayrim NO belgilari oshdi, lekin hech biri FMDni boshlang‘ichdan yaxshilamadi. Farmakokinetika klinik yurak-qon tomir foydasini bermaydi.
VINTAGE MI, Schulman va hamkasblar (2006), ilk ST ko‘tarilgan infarktdan keyin 153 bemorni olti oy L-arginin yoki plaseboga randomizatsiya qildi. Tomir qattiqligi va chiqarish fraksiyasi foydasi tasdiqlanmadi; arginin guruhida olti o‘lim, plaseboda nol bo‘lib, qabul to‘xtatildi. Bu substrat mantiqini infarktdan keyingi davolashga ko‘chirishni cheklaydi. Ovqat arginini yoki sitrullin barcha guruhda bir xil zararli demaydi, lekin faqat Arg/ADMA uchun avtomatik qo‘shimchani rad etadi.
Tiollar, antioksidantlar va vitamin kofaktorlari
N-atsetilsistein glutation sintezi uchun sistein manbai bo‘lishi mumkin. O‘zi sintezni katalizlovchi ferment emas va barcha bemorda DDAH1ni universal tiklashi isbotlanmagan. Hujayra redoksi va klinik xavf o‘zgarishi alohida natijalar.
Alfa-lipoik kislota va qaytarilgan shakli tiol kimyosida muhokama qilinadi. Erkin qo‘shimcha energiya fermentiga kovalent bog‘langan lipoil qoldig‘idan farq qiladi. Termodinamik imkon DDAH1 sisteiniga yetarli moddani yetkazishni kafolatlamaydi. Oksidlanish sxemasi klinik dozani bermaydi.
Askorbat ba’zi modelda NOS kofaktor muhitini saqlashi, tokoferol lipid oksidlanish zanjirini to‘xtatishi mumkin. Selen selenosistein orqali selenoprotein, jumladan ayrim glutation peroksidazaga kiradi, barcha antioksidantning erkin metall kofaktori emas. GPX substrat va joylashuvda farqlanadi. Vitamin va selen aralashmasi ADMAni maxsus chiqaradi yoki har dozada xavfsiz degan dalil yo‘q.
Folat, B12 va B6 ovqat, kasallik va ko‘rsatma bilan baholanadi. Tanqislik va ortiqcha miqdor farqli; uzoq yuqori B6 neyropatiya qilishi mumkin. PLPga bog‘liq AGXT2 yoki gomotsistein aloqasi hammaga bir yuqori dozali kompleksni asoslamaydi.
Dori va o‘simlik moddalari: mexanizm davoni tanlamaydi
PPARγ signali metabolik muhit va ekspressiyani o‘zgartirishi mumkin; ayrim ishlar ADMAni muhokama qilgan. Telmisartan AT1ni bloklaydi va qo‘shimcha tajribaviy xususiyatga ega; tiazolidindionlar insulin sezgirligiga ta’sir qiladi. DDAH regulyatsiyasi gipotezasi ularni ADMA yuqoriligida universal birinchi tanlov qilmaydi. Ko‘rsatma, qarshi ko‘rsatma va klinik natija aniq kasallik va preparatga tegishli.
Statinlar mos guruhda LDL va yurak-qon tomir xavfini kamaytiradi. ADMA ta’siri ishlar orasida turli; doimiy 20% pasayish sinf uchun majburiy emas. Hujayradagi DDAH1 yoki PRMT o‘zgarishi tasdiqlangan lipid mexanizmi va sinovni almashtirmaydi.
FXRga bog‘liq jigar va boshqa transkripsiya yo‘llari tadqiqot mavzusi. Modelda DDAH1 o‘zgarishi ADMA uchun FXR agonistini ishlatish ko‘rsatmasini yaratmaydi. To‘qima, ekspozitsiya, xavfsizlik va muhim natija kerak.
Resveratrol, kurkumin va polifenollarga antioksidant, yallig‘lanish va signal gipotezalari taklif qilingan. Hujayra yoki hayvon natijasi konsentratsiya va biologik mavjudlikka bog‘liq. Insonda universal pasayish foizi yoki voqea oldini olish isbotlanmaydi. Kombinatsiya mas’ul komponentni aniqlashni qiyinlashtiradi; tarkib, o‘zaro ta’sir va ko‘tara olish alohida muhim.
Faollik, ovqat va NOSdan mustaqil NO
Oqim va siljish kuchlanishi endoteliy signali, eNOS, Akt va transkripsiyaga ta’sir qiladi. Jismoniy faollik ko‘plab yurak-qon tomir belgilarini yaxshilaydi, ADMA javobi esa guruh va aralashuvga bog‘liq. Bir xil hafta ichida 15–20% kamayish majburiy emas. Mashqdan DDAH2 ekspressiyasi ko‘payishi uning bevosita gidrolizini tasdiqlamaydi.
Ovqat sifati, yetarli oqsil va mikronutrient, chekishdan voz kechish va metabolik omil nazorati umumiy oldini olishda muhim. Barcha foyda ADMA orqali bo‘lishi shart emas. O‘rta dengiz ratsioni yoki ayrim qayta ishlangan mahsulotlarni kamaytirish kafolatli analizli «metilarginin detoksi» emas.
Ovqat nitratlari NOSni qisman chetlab o‘tuvchi nitrat–nitrit NO yo‘liga kirishi mumkin. Jarayon ishlov, mikroblar va to‘qima sharoitiga bog‘liq. Muqobil signal manbai ADMAni bevosita chiqarmaydi. Har eNOS nuqsonini to‘liq qoplaydi yoki gipertoniya davosini almashtiradi deb bo‘lmaydi.
Sutkalik regulyatsiya xronobiologiyani qiziqarli qiladi. Ammo «ertalab substrat, kechqurun antioksidant» universal sutkalik ADMA himoyasi sifatida isbotlangan reja emas. Dori vaqti o‘z dalili va maqsadiga asoslanadi, tasavvurdagi molekulyar ketma-ketlikka emas.
Klinik baholashda foydalanish
Yuqori natija buyrak, jigar, bosim, lipid, glikemiya, yallig‘lanish va klinika bilan birga tushuntiriladi. Avval metod, referens, sharoit va maqsad aniqlanadi. Kutilmagan qiymat o‘zi qo‘shimchalar to‘plami yoki kerakli davoni almashtirishga asos emas.
| Klinik savol | Qarorga kerak ma’lumot | ADMA roli va chegarasi |
|---|---|---|
| Umumiy yurak-qon tomir xavfi | Yosh, bosim, chekish, lipid, diabet, oilaviy va klinik tarix; validatsiyalangan model | Universal davo chegarasisiz qo‘shimcha tadqiqot markeri |
| Buyrak buzilishi | Kreatinin, hisoblangan filtratsiya, albuminuriya va sabab | Almashinuvni ko‘rsatishi mumkin, bosqichni yakka bermaydi |
| Ko‘krak og‘rig‘i yoki dekompensatsiya | Ko‘rik, EKG, qabul qilingan marker va kerakli tasvir | Troponin, NT-proBNP va shoshilinch bahoni almashtirmaydi |
| Nutrient tanqisligi | Ovqat, simptom, xavf va mos analiz | B6, folat, B12 yoki antioksidant tanqisligini avtomatik isbotlamaydi |
| Aralashuv javobi | Oldindan belgilangan klinik natija, ko‘tara olish va validatsiyalangan o‘lchov | Past ADMA yaxshi prognozni isbotlamaydi |
Oqimga bog‘liq dilatatsiya va puls to‘lqini tezligi protokol, qurilma, bosim, yosh va boshqa omillarga bog‘liq. Bitta FMD foizi ADMA ta’sirining universal chegarasi emas. Qattiqlik ham sabab metabolitini topmaydi. Analiz, funksional test va davolash qarori aloqasi alohida validatsiya talab qiladi.
Tayyorlash usuli va dalil chegaralari
Bu ADMA haqidagi narrativ ilmiy tahlil bo‘lib, bahsli mexanizm, strukturaviy yozuv va klinik natija 2026-yil 8-oktabrda maqsadli tekshirildi. Birlamchi bibliografik yozuvlar, mavjud annotatsiyalar, birlamchi maqolalarning indekslangan qismlari va ochiq RCSB sahifalaridan foydalanildi. Ayrim to‘liq matnlar mavjud bo‘lmagani sabab tegishli xulosalar ochiq birlamchi yozuv va annotatsiyalarga tayangan.
To‘liq sistematik qidiruv, mustaqil GRADE bahosi, rasmiy tashqi taqriz yoki klinik protokol validatsiyasi bajarilmadi. Son, dizayn va nom yozuv tekshirishga imkon berganda keltirildi; asossiz universal chegara va davo va’dalari chiqarildi. Eng barqaror xulosalar ADMAning metillangan oqsildan kelishi, DDAH1 bevosita gidrolizi, AGXT2 muqobil yo‘li va NOSni tormozlashiga oid. Prognostik qiymat, mahalliy bo‘limlar va insonda ADMAni maqsadli o‘zgartirish foydasi aniq guruh va klinik tadqiqotlarni talab qiladi.
Tez-tez beriladigan savollar
ADMA va SDMA bir moddami?
Ular teng massali pozitsion izomer, metillari turlicha joylashgan. ADMA NOSni bevosita tormozlaydi; SDMA odatdagi bevosita ingibitor emas, buyrakka yaqinroq bog‘liq.
DDAH2 ADMAni parchalaydimi?
Zamonaviy ko‘p markazli ish bevosita gidrolizni tasdiqlamadi. Uning biologik ta’siri DDAH1 katalizidan farqlanadi.
Universal xavfli konsentratsiya bormi?
Bu dalillar umumiy tashxis yoki davo chegarasini bermaydi. Referens, tadqiqot chegarasi va shaxsiy xavf boshqa tushunchalar.
Yuqori ADMAda arginin kerakmi?
Bitta tahlil qo‘shimchani asoslamaydi. Raqobatli kinetika foyda kafolati emas; VINTAGE MI salbiy natijasi va infarktdan keyingi xavfsizlik signali muhim.
LC-MS/MS va ELISA chegaralari tengmi?
Moslik tekshirilmasdan teng emas. Selektivlik, matritsa, kalibratsiya, tayyorlash va kit yoki aniq metod ta’sir qiladi.
Past ADMA xavf kamayganini ko‘rsatadimi?
O‘zi isbotlamaydi. Marker o‘zgarishi klinik yaxshilanishdan boshqa; muayyan aralashuv va guruh natijalari tekshiriladi.
Manbalar
- Ragavan VN et al. A multicentric consortium study demonstrates that dimethylarginine dimethylaminohydrolase 2 is not a dimethylarginine dimethylaminohydrolase. Nat Commun. 2023;14:3392.
- Murray-Rust J et al. Structural insights into the hydrolysis of cellular nitric oxide synthase inhibitors by dimethylarginine dimethylaminohydrolase. Nat Struct Biol. 2001;8:679–683. Structure 1H70.
- Leiper J et al. Disruption of methylarginine metabolism impairs vascular homeostasis. Nat Med. 2007;13:198–203. Human DDAH1 structure 2JAI.
- Leiper J et al. S-nitrosylation of dimethylarginine dimethylaminohydrolase regulates enzyme activity: further interactions between nitric oxide synthase and dimethylarginine dimethylaminohydrolase. PNAS. 2002;99:13527–13532.
- Rodionov RN et al. Human alanine-glyoxylate aminotransferase 2 lowers asymmetric dimethylarginine and protects from inhibition of nitric oxide production. J Biol Chem. 2010;285:5385–5391.
- Schwedhelm E et al. Asymmetric dimethylarginine reference intervals determined with liquid chromatography-tandem mass spectrometry: results from the Framingham offspring cohort. Clin Chem. 2009;55:1539–1545.
- Schulman SP et al. L-arginine therapy in acute myocardial infarction: the Vascular Interaction With Age in Myocardial Infarction (VINTAGE MI) randomized clinical trial. JAMA. 2006;295:58–64.
- Schulze F et al. Asymmetric dimethylarginine is an independent risk factor for coronary heart disease: results from the multicenter CARDIAC study. Am Heart J. 2006;152:493.e1–8.
- Pikula A et al. Association of plasma ADMA levels with MRI markers of vascular brain injury: Framingham offspring study. Stroke. 2009;40:2959–2964.
- Martens-Lobenhoffer J, Bode-Böger SM. Fast and efficient determination of arginine, symmetric dimethylarginine, and asymmetric dimethylarginine in biological fluids by hydrophilic-interaction liquid chromatography-electrospray tandem mass spectrometry. Clin Chem. 2006;52:488–493.
- Achan V et al. Asymmetric dimethylarginine causes hypertension and cardiac dysfunction in humans and is actively metabolized by dimethylarginine dimethylaminohydrolase. Arterioscler Thromb Vasc Biol. 2003;23:1455–1459.
- Scalera F et al. Endogenous nitric oxide synthesis inhibitor asymmetric dimethyl L-arginine accelerates endothelial cell senescence. Arterioscler Thromb Vasc Biol. 2004;24:1816–1822.
- Schnabel R et al. Asymmetric dimethylarginine and the risk of cardiovascular events and death in patients with coronary artery disease: results from the AtheroGene Study. Circ Res. 2005;97:e53–9.
- Böger RH et al. Plasma asymmetric dimethylarginine and incidence of cardiovascular disease and death in the community. Circulation. 2009;119:1592–1600.
- Tang WHW et al. Differential effects of arginine methylation on diastolic dysfunction and disease progression in patients with chronic systolic heart failure. Eur Heart J. 2008;29:2506–2513.
- Dückelmann C et al. Plasma asymmetric dimethylarginine and cardiovascular events in patients with acute decompensated heart failure. Transl Res. 2008;152:24–30.
- Stühlinger MC et al. Relationship between insulin resistance and an endogenous nitric oxide synthase inhibitor. JAMA. 2002;287:1420–1426.
- Schwedhelm E et al. Pharmacokinetic and pharmacodynamic properties of oral L-citrulline and L-arginine: impact on nitric oxide metabolism. Br J Clin Pharmacol. 2008;65:51–59.
- Wang Y et al. Developing dual and specific inhibitors of dimethylarginine dimethylaminohydrolase-1 and nitric oxide synthase: toward a targeted polypharmacology to control nitric oxide. Biochemistry. 2009;48:8624–8635.
- Zurita-Lopez CI et al. Human protein arginine methyltransferase 7 (PRMT7) is a type III enzyme forming ω-NG-monomethylated arginine residues. J Biol Chem. 2012;287:7859–7870.
- Yang Y et al. PRMT9 is a type II methyltransferase that methylates the splicing factor SAP145. Nat Commun. 2015;6:6428.
- Kittel A et al. Alanine-glyoxylate aminotransferase 2 (AGXT2) polymorphisms have considerable impact on methylarginine and β-aminoisobutyrate metabolism in healthy volunteers. PLoS One. 2014;9:e88544.