
GPX4 және ферроптоз: глутатион, селен және мембрана липидтерін қорғау
GPX4 липид гидропероксидтерін қалай тотықсыздандырады, GSH пен селен неге қажет, қатарлас қорғаныс қалай жұмыс істейді және клиникалық шектеулер қандай.
GPX4 липид гидропероксидтерін қалай тотықсыздандырады, GSH пен селен неге қажет, қатарлас қорғаныс қалай жұмыс істейді және клиникалық шектеулер қандай.
Глутатионпероксидаза-4 (GPX4) фосфолипид гидропероксидтерін тотықсыздандырып, мембраналардың асқын тотығуын жасуша тіршілігін жоғалтатын деңгейден төмен ұстайды. Бұл фермент селен, цистеин және глутатион алмасуын липид құрамымен, темірдің қолжетімділігімен және митохондрия жұмысымен байланыстырады. Ферроптоз тотығатын субстраттар, катализге қолжетімді темір және жеткіліксіз қорғаныс белгілі бір үйлесімде болғанда туындайды; ол кез келген тотығу стрессіне тең емес.
GPX4 механизмдері тіндерді қорғау мен ісік осалдығын зерттеуге негіз береді. Алайда тежегіштің жасушалық әсері, тотығу маркерінің өзгеруі және пациент жағдайының жақсаруы — дәлелдің әртүрлі деңгейлері. Оларды бір-бірінің орнына қолдануға болмайды.
«Ферроптоз» терминін Dixon және әріптестері 2012 жылы зерттелген жасушаларда эрастин туғызған, темірге тәуелді реттелетін өлім үшін енгізді. Yang және әріптестерінің 2014 жылғы жұмысы осы үдеріске сезімталдықты GPX4-пен байланыстырды. Бұл апоптоздың жаңа түрі емес: негізгі зақым — тотыққан мембрана липидтерінің жиналуы. Сонымен бірге бір тінде өлу жолдары қатар жүруі мүмкін; нәтиже жасуша моделіне, қоректік ортаға және өлшеу уақытына тәуелді.
| Үдеріс | Негізгі зерттелетін жүйе | Механизмдерді ажыратуға көмектесетін белгілер |
|---|---|---|
| Апоптоз | Каспазалар, BCL-2, цитохром c-ның митохондриядан шығуы | Каспазалардың белсенуі, ядро морфологиясы және жолды тиісті тежеу |
| Некроптоз | Тиісті жағдайда RIPK3 және MLKL | MLKL фосфорлануы/белсенуі және генетикалық растау |
| Пироптоз | Газдерминдер және қабыну протеазалары | Газдерминдердің ыдырауы, саңылаулар түзілуі, қабыну сигналдары |
| Ферроптоз | Темір, фосфолипид тотығуы, GPX4 және қатарлас қорғаныс | Липидтік, функционалдық және генетикалық нәтижелер жиынтығы, соның ішінде тиісті тежегіштермен өлімнің алдын алу |
| Купроптоз | Мыс және липоилденген митохондриялық ақуыздар | Мысқа тәуелділік пен ақуыз зақымын растау; темірге тәуелді липид тотығуынан өзгеше |
Купроптоз — мысқа тәуелді бөлек механизм. Tsvetkov және әріптестерінің 2022 жылғы жұмысында мыс үшкарбон қышқылдары циклінің липоилденген компоненттерімен, соның ішінде DLAT-пен байланысқан; осы ақуыздардың агрегациясы мен темір-күкірт ақуыздарының жоғалуы протеоуытты стресспен қатар жүрген. Зерттелген жасушаларда митохондриялық тыныс, FDX1 және липоилдену маңызды. Бұл мыстың кез келген уыттылығын купроптозға жатқызуға немесе эксперименттік тежегіштердің таңдамалылығын барлық тінге көшіруге негіз емес.
Бір каспаза тежегішінің әсер етпеуі ферроптозды дәлелдемейді. MDA-ның жеке өсуі, GSH азаюы немесе бір зондпен бояу да жеткіліксіз. Липид тотығуы, темірге тәуелділік, липид радикалдарын ұстайтын қосылыстармен жасушаларды құтқару және GPX4 не липид алмасуына араласқанда сезімталдық өзгеруі туралы үйлесімді деректер сенімдірек. Тежегіштердің таңдамалылығы да шектеулі, сондықтан тәуелсіз тәсілдер маңызды.
Гидропероксид тобы май қышқылы тізбегінің бір бөлігін полярлырақ етеді. Тотыққан тізбек қосқабат бетіне жақындап, көрші липидтердің орналасуын өзгертіп, өткізгіштік ақауларын туғызуы мүмкін. Кейінгі реакциялар қысқарған липидтер мен реакцияға қабілетті альдегидтер түзеді. Осы өзгерістердің жиналуы мембраналардың тосқауылдық қызметін бұзып, жарылуына әкелуі ықтимал.
Кейбір ферроптоз модельдерінде митохондриялар кішірейіп, кристаларын жоғалтады және мембраналары тығызданады. Бұл белгілер әмбебап немесе дербес диагностика емес. Саңылау өлшемі, тотыққан липид үлесі және қосқабаттың жұқаруы модельге тәуелді: оларды барлық жасушаға ортақ өлу шегіне айналдыруға болмайды. Ферроптоздың әр эксперименттік нұсқасы митохондриялық метаболизмді бірдей дәрежеде қажет етпейді.
Адамда GPX1–GPX8 сипатталған. Олардың орналасуы, каталитикалық қалдығы, қолжетімді субстраттары және тотықсыздандыру серіктестері әртүрлі. GPX4 үшін күрделі липидтердің, соның ішінде фосфолипидтердің гидропероксидтерін май қышқылын мембранадан алдын ала ажыратпай тотықсыздандыру қабілеті ерекше маңызды. Осы реакция ферментті ферроптоздың негізгі шектеушісіне айналдырады.
| Өкіл | Ерекшелігі | Салыстыру шектеуі |
|---|---|---|
| GPX1 | Жасушада ерігіш пероксидтермен жұмыс істейтін селенопротеин | H₂O₂-ге қатысты белсенділік мембрана фосфолипидтерін қорғауға тең емес |
| GPX2 | Эпителий тіндерінде айқын көрінетін селенопротеин | Экспрессиясы мен қорғаушы әсері тінге тәуелді |
| GPX3 | Жасушадан тыс бөлінетін глутатионпероксидаза | Жасушаішілік GPX4-ті алмастырмайды |
| GPX4 | Липид гидропероксидтеріне қолжетімді мономерлі селенопротеин | Маңызын субстраттар мен қатарлас жүйелер де анықтайды |
| GPX5 және GPX6 | Атап айтқанда, репродуктивтік/сезімтал тіндермен байланысты; GPX5 құрамында Cys, адам GPX6 құрамында Sec бар | GPX6 қасиеттері түрлер арасында өзгереді |
| GPX7 және GPX8 | Эндоплазмалық тордың тотығу арқылы бүктелумен байланысты Cys-құрамды ақуыздары | Отбасы атауы GSH бірдей пайдаланылатынын білдірмейді |
Транскрипция мен трансляция басталуының нұсқалары GPX4-тің цитозольдік, митохондриялық және ядролық формаларын қамтамасыз етеді. Бағыттаушы тізбектер ақуыздың таралуын өзгертеді; нақты ұзындық пен қалдықтардың нөмірленуі қарастырылатын формаға тәуелді. Цитозольдік GPX4 кең таралған липид қорғанысын қамтамасыз етеді, митохондриялық форма тиісті компартментті қорғауға және сперматозоидтардың жетілуіне қатысады.
Сперматогенез кезінде GPX4 әдеттегі пероксидазалық қызметпен шектелмейді. Митохондриялық форма сперматозоидтың ортаңғы бөлігіндегі құрылымдарды қалыптастыруға қатысады, ядролық форма хроматиннің тығыздалуымен және ақуыз тиолдарының тотығуымен байланысты. Бұл рөлдерді ажырату керек: ядролық форманы автоматты түрде митохондриялық капсуланың жалғыз құрастырушысы деуге болмайды.
Селеноцистеин (Sec) ақуызға трансляция барысында енгізіледі. Әдетте тоқтауды білдіретін UGA кодоны тиісті жүйе мен мРНҚ-ның 3′-трансляцияланбайтын аймағындағы SECIS элементі болғанда Sec ретінде оқылады. Үдеріске арнайы тРНҚ^[Ser]Sec, SBP2 және eEFSec факторы қатысады.
Алдымен SerRS осы тРНҚ-ға серинді қосады. PSTK ATP жұмсап, байланысқан серинді фосфорлайды; содан кейін SEPSECS SEPHS2 қатысуымен түзілген селенофосфатты пайдаланып, оны Sec-ке айналдырады. Тек осы дайындықтан соң Sec-тРНҚ аминқышқылды рибосомаға жеткізеді. Демек, селеннің келуі дайын GPX4-ке бос «кофактордың» бірден қосылуы емес.
Селен тапшылығында әртүрлі селенопротеиндердің синтезі бірдей өзгермейді. Иерархия мРНҚ реттелуіне, трансляцияға және тін қажеттілігіне тәуелді; оны GPX4-тің сақталатын бір тұрақты үлесімен сипаттауға болмайды. Тағамдық мәні мен артық мөлшер қаупі селеннің қызметі және қауіпсіздігі туралы мақалада қарастырылған.
Селенол мен тиолдың қышқылдығы және реакциялық қабілеті өзгеше; бос аминқышқылдардың pKa мәндері ақуыз белсенді орталығының қасиеттерін автоматты түрде анықтамайды. GPX4 ішіндегі Sec ортасы, соның ішінде Gln, Trp және Asn, каталитикалық реакцияларды ұйымдастыруға көмектеседі. Бір атомның химиясымен қатар липид субстратының ферментке қолжетімділігі де маңызды.
Ingold және әріптестерінің тәжірибелерінде Sec-ті Cys-пен ауыстыру тышқандардың қалыпты эмбриогенезіне жеткілікті белсенділікті сақтаған, бірақ фермент пен жасушаларды пероксид стрессіне осал еткен. Кейбір интернейрондардың тіршілігі Sec-құрамды GPX4-ке тәуелді болып, ауыр құрысулар туындаған. Сондықтан Sec-ті Cys-пен ауыстыруды Gpx4 толық нокаутына теңеп, барлық эмбрион міндетті түрде өледі деуге болмайды. Sec-тің шамадан тыс тотығуға төзімділігі GPX4 мүлде белсенділігін жоғалтпайды дегенді де білдірмейді.
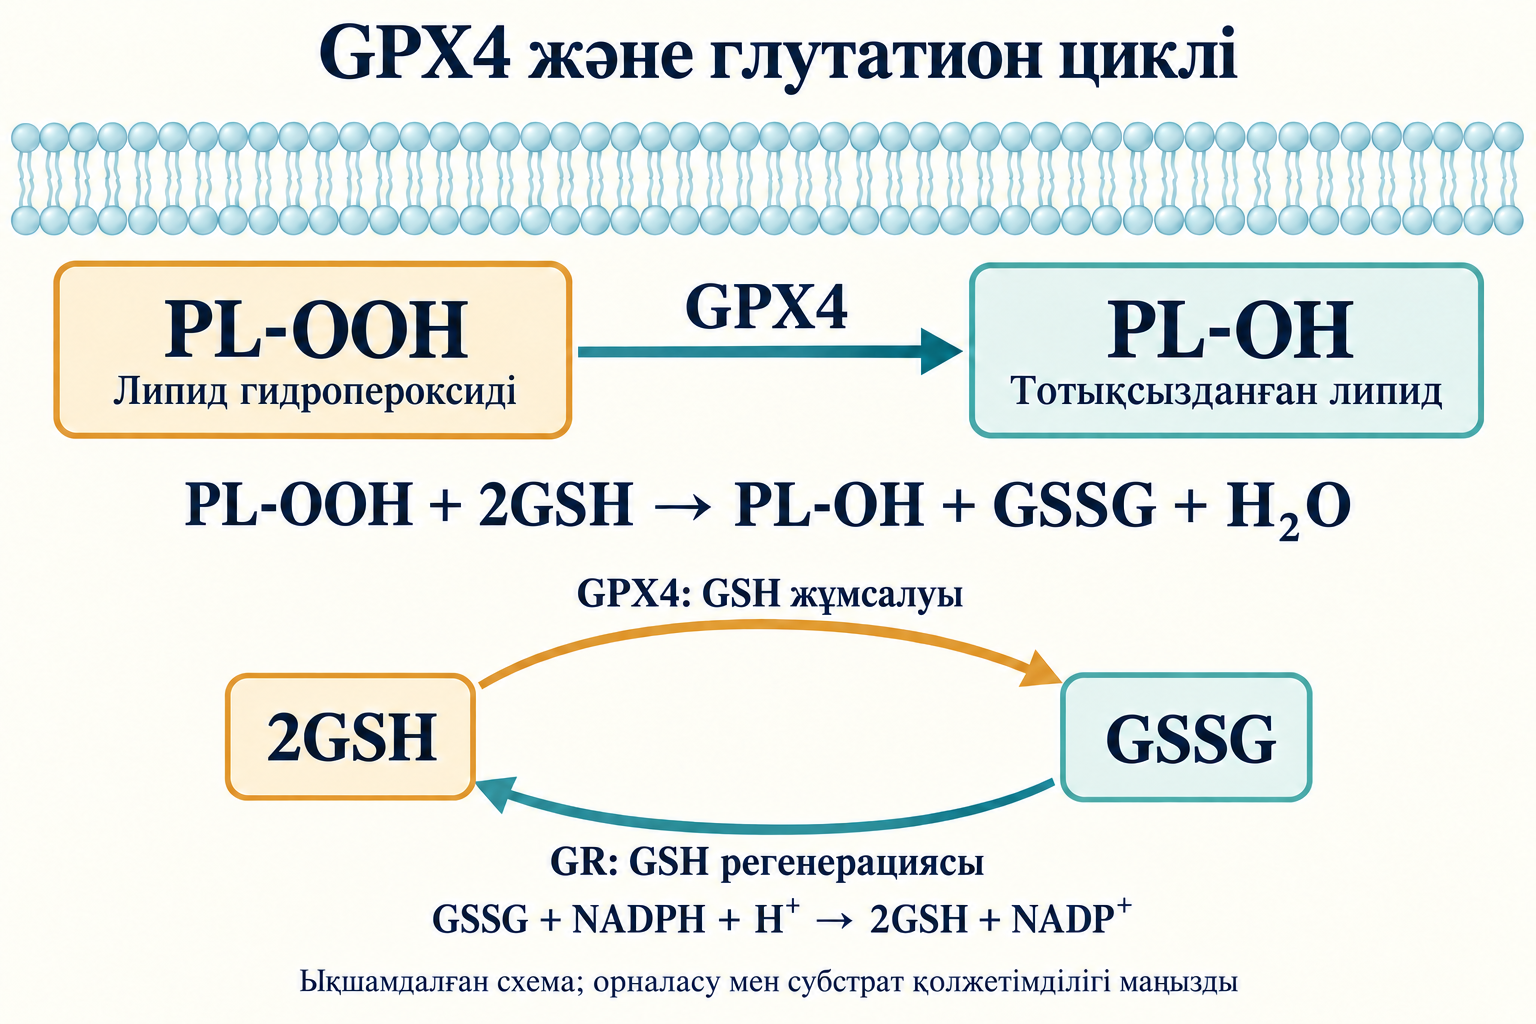
Фосфолипид гидропероксидін PL-OOH, тотықсызданған өнімді PL-OH, белсенді ферментті Enz-Se⁻ деп белгілейік. Циклдің ықшамдалған сатылары:
Жиынтық реакция:
Глутатионредуктаза (GR) GSSG-ті тотықсызданған формаға қайтарады:
GPX4 GSH жұмсайды, ал циклді қолдау NADPH қажет етеді. Ағындар бірнеше субстрат концентрациясына, орналасуға және фермент қолжетімділігіне тәуелді. Оларды әмбебап «нөлдік Km» не жалғыз GSH концентрациясына сыйғызуға болмайды. GPX4 гидропероксид субстратын жояды, ал липофильді радикал ұстағыштар негізінен радикалдық тізбектің таралуын үзеді: бұл әрекеттер бірін-бірі толықтырады.
System x_c⁻ дисульфид байланысы арқылы қосылған жеңіл тасымалдаушы SLC7A11 және ауыр SLC3A2 суббірліктерінен тұрады. Ол жасушадан тыс цистинді жасушаішілік глутаматқа 1:1 қатынасында алмастырады. Импорттан кейін цистин екі цистеин молекуласына тотықсызданады; бұл сатыға да тотықсыздандыру ресурстары қажет. Цистеин одан әрі GSH синтезіне жұмсалады.
Жасушадан тыс глутаматтың жоғары деңгейі цистин импортын қиындатуы мүмкін, ал ортадағы цистин тапшылығы тәжірибе нәтижесін өзгертеді. Аминқышқылдар тапшы болғанда GCN2 eIF2α-ны фосфорлап, ATF4 жауабын қолдайды. Nrf2 KEAP1 жүйесі арқылы реттеліп, қорғаныш гендердің, соның ішінде цистин және GSH алмасуының буындарын қолдайды. p53 SLC7A11-ді басуы мүмкін, бірақ ферроптозға әсері жасуша контексіне және басқа нысаналарына тәуелді; бұл әмбебап «p53 қосылды — ферроптоз қосылды» ауыстырғышы емес.
GSH — γ-глутамил-цистеинил-глицин трипептиді. Глутаматцистеинлигаза (GCL) каталитикалық GCLC және өзгертуші GCLM суббірліктерінен тұрады; ол γ-глутамилцистеин түзеді. Глутатионсинтетаза (GSS) глицинді қосады:
Ерекше γ-байланыс көптеген әдеттегі пептидазалар үшін GSH қолжетімділігін азайтады, бірақ молекуланы ыдырамайтын етпейді: оның алмасуына γ-глутамилтрансфераза және басқа жолдар қатысады. GSH GCL-ді кері байланыспен реттейді; GCLM кешеннің кинетикалық қасиеттерін өзгертеді. Синтез жылдамдығын аминқышқылдар, ATP және ферменттер реттелуі анықтайды, сондықтан бір прекурсордың артуы қорғаныш ағынының өсуіне кепіл болмайды.
Негізгі синтез цитозольде жүреді, содан GSH басқа компартменттерге өтеді. Митохондриялар үшін бұл түбегейлі маңызды: олардың мембранасы алмасуды шектейді, ал тотықсыздандыру ресурстары мен липид зақымы жергілікті. Wang және әріптестерінің 2021 жылғы жұмысы сүтқоректілер жасушаларында GSH-тің митохондриялық импорты үшін SLC25A39 қажет екенін көрсетті. Тікелей тасымалды тек дикарбоксилат және 2-оксоглутарат тасымалдаушылары SLC25A10 мен SLC25A11-ге телитін ескі түсіндірмені осы деректерге дәлелденген балама деп қарастыруға болмайды.
Эндоплазмалық торда тотығатын орта ақуыз бүктелуі мен дисульфидтердің түзілуіне қажет. Бірақ жалғыз GSH/GSSG көрсеткіші бүкіл редокс-күйді сипаттамайды. Бұл жұптың потенциалы абсолютті концентрацияларға, [GSH]²/[GSSG] қатынасына және pH-қа тәуелді; тұтас қан үлгісі жеке мембрана не митохондриядағы өлшемді алмастырмайды. Пациентте ферроптозды анықтайтын әмбебап редокс-потенциал шегі жоқ.
Эрастин мен оның IKE туындысы цистинмен қамтамасыз етуді бұзу үшін қолданылады; сульфасалазин де system x_c⁻-ке әсер етуі мүмкін. Сорафениб әсері модельге тәуелді: бұл ферроптоз осінің әмбебап таңдамалы тежегіші емес, бірнеше нысанаға әсер ететін ісікке қарсы препарат. Цистеиннің балама көздері жеткілікті болса, жасуша бөгетті ішінара айналып өте алады, мысалы транссульфурация арқылы.
RSL3 және ML162 GPX4-тің тікелей тежегіштері ретінде қолданылады; ML210 жасуша ішінде реакцияға қабілетті тежегішке айналады. Тиімділік пен таңдамалылық құрылымға, концентрацияға және әсер ету ұзақтығына тәуелді; атауы адамға арналған дайын қауіпсіз емді білдірмейді. FIN56 GPX4 және CoQ алмасуының өзгерістерін біріктіреді, FINO2 темір мен липид тотығуына әсер етіп, GPX4 қорғанысын жанама бұзады. Әртүрлі ықпал нүктелері тәжірибені құруға көмектеседі, бірақ нысана мен өлу механизмін растауды қажет етеді.
Көпқанықпаған май қышқылдарында (PUFA) сутек салыстырмалы оңай бөлінетін бис-аллилдік орындар бар. Арахидон қышқылы (AA, 20:4) мен адрен қышқылы (AdA, 22:4) бірнеше осал аймақты қамтиды. AA және AdA бар фосфатидилэтаноламиндер ферроптоздық тотығу субстраттары ретінде мұқият зерттелген. Алайда тізім осы қышқылдармен не бір фосфолипид класымен шектелмейді: липидом мен жолдар жасушалар арасында өзгеше.
Бірқанықпаған май қышқылдары (MUFA), соның ішінде олеин қышқылы, мембраналарды өзгертіп, оңай тотығатын PUFA үлесін азайтуы мүмкін. SCD1 арқылы синтез және ACSL3 қатысуымен липид енгізу маңызды. Бұл субстрат қорының өзгеруі, MUFA молекуласы барлық радикалды тікелей ұстайды деген дәлел емес. Қаныққан тізбектер осы жолға азырақ сезімтал, бірақ жасуша кез келген зақымға төзімді бола қалмайды.
Бис-аллилдік орындарда сутекті дейтериймен алмастыру кинетикалық изотоптық әсер есебінен байланыс үзілуін баяулатуы мүмкін. Дейтерленген PUFA тотығудың таралуын азайту тәсілі ретінде зерттелуде. Бұл реакцияның химиялық мүмкін еместігі емес, баяулауы; әсер шамасын, тіндерге енгізілуін және клиникалық пайдасын бөлек өлшеу қажет.
ACSL4 белгілі PUFA-ға басымдық беріп, ұзын тізбекті май қышқылдарын белсендіреді. Ацил-CoA түзілген соң LPCAT3 Ландс циклінде лизофосфолипидтердің қайта ацилденуіне қатысады:
Зерттелген модельдерде ACSL4 жоғалуы липидомды өзгертіп, белгілі индукторларға сезімталдықты азайтады. Бұл себептік бақылау, бірақ ACSL4 жоқ әрбір жасуша толық қорғалады деген ереже емес. Басқа ферменттер, қолжетімді май қышқылдары және субстрат түзілуінің тәуелсіз жолдары осы тәуелділікті өзгерте алады.
Липоксигеназалар тиісті липид субстраттарына оттек енгізеді. Wenzel және әріптестерінің жұмысында ALOX15/PEBP1 кешені тотығудың субстраттық бағытын өзгертіп, тотыққан PE түзген. PEBP1 сигналдық ақуыздарды да реттейді; оның күйі мен әрекеттесулері сигнал беруді липид химиясымен байланыстыруы мүмкін.
Бұл механизм ферроптоздың міндетті жалғыз бастауы емес. Кейбір модельдерде липоксигеназалар, басқаларында ферментсіз реакциялар және өзге көздер маңызды. «LOX тежегіші» аталған қосылыстың әсері өздігінен LOX-тың себептік рөлін дәлелдемейді: мұндай заттардың кейбірі радикалдарды да ұстайды.
LH — бастапқы липид, L• — оның радикалы, LOO• — пероксил радикалы, LOOH — гидропероксид. Ықшамдалған тізбек:
Бірінші теңдеу темір қатысатын реакциялық радикал түзілуінің бір жолын көрсетеді; нақты реакциялар лигандтарға, ортаға және металдың қолжетімділігіне тәуелді. Соңғы саты зақымды көрші липидке береді. GPX4 тізбекті қоректендіретін гидропероксид қорын азайтады, ал радикал ұстағыштар оның жалғасуын тежейді.
Тотыққан липидтер ыдырағанда малон диальдегиді (MDA), 4-гидроксиноненаль (4-HNE) және басқа электрофильдер түзіледі. Олар ақуыздарды өзгертіп, ферменттер жұмысы мен сигнал беруге әсер етеді. Бұл липид зақымының белгілері, бірақ тек ферроптозға тән емес. Олардың шығуын, орналасуын және нақты жасуша өлімімен байланысын түсіндіру керек.
Трансферрин негізінен Fe³⁺ тасымалдап, TfR1 рецепторымен байланысады. Эндоцитоздан соң эндосома қышқылдануы темірдің босауын жеңілдетеді; STEAP3 Fe²⁺-ке тотықсыздандыруға, DMT1 эндосома мембранасынан тасымалдауға қатысады. Одан әрі темір ферменттерге, митохондрияларға және қорларға түседі немесе лабильді қорды толықтырады.
Лабильді темір қоры (LIP) — салыстырмалы қолжетімді лигандтармен байланысқан алмасатын темір, толық координацияланбаған бос иондар ерітіндісі емес. Тотығу реакцияларына қатысу координация мен компартментке тәуелді. Жалпы темір, сарысулық ферритин және жергілікті каталитикалық қолжетімділік бірдей емес. Сондықтан жоғары ферритиннің өзі ферроптозды дәлелдемейді және хелатор қолдануға көрсетілім болмайды.
Темір қолжетімділігі төмендегенде IRP ақуыздары мРНҚ-дағы IRE элементтерімен байланысып, сақтау және тасымалдау ақуыздарының синтезін өзгертеді. IRP1 IRE-байланыстыру күйі мен темір-күкірт кластері бар аконитаза қызметі арасында ауыса алады. IRP2 тұрақтылығы FBXL5 жүйесіне және жасуша күйіне байланысты. IRE-нің мРНҚ-дағы әртүрлі орналасуы темір сіңіру мен сақтауды үйлестіреді.
Ферритин — FTH1 және FTL-дің 24 суббірлігінен тұратын қабықша. FTH1 ферроксидазалық белсенділікті қамтамасыз етеді; кешен минералданған темірді ұстап, жағымсыз реакцияларға қолжетімділігін азайтады. Қабықшаның ең үлкен сыйымдылығы әр молекула бірдей толған дегенді білдірмейді. Сақтау динамикалық тепе-теңдікте ғана пайдалы: қалыпты метаболизмге темір жұмылдыру қажет, ал қолжетімді металдың артығы зақымды күшейте алады.
NCOA4 ферритинді танып, лизосомалық ыдырауға жеткізуге көмектеседі; бұл үдеріс ферритинофагия деп аталады. Ақуыз қабықшасы бұзылғанда қайта пайдаланылатын темір босайды. Жол физиологиялық айналымды қолдайды және белгілі жағдайда ферроптозға сезімталдықты арттырады.
Қорды жұмылдыру міндетті «жарылысты босау» мен өлімді білдірмейді: нәтиже аутофагиялық ағынға, темір экспорты мен қолданылуына, липид құрамына және антиоксиданттық қорғанысқа тәуелді. Тәжірибеде NCOA4 бар болуын, ферритиннің нақты ыдырауын және қолжетімді темір өзгеруін ажырату керек. Лизосоманы тежеу көптеген үдерістерге әсер етеді және ферритинофагияның таңдамалы клиникалық ауыстырғышы емес.
Bersuker және Doll-дың 2019 жылғы жұмыстары бұрын AIFM2 аталған FSP1 GPX4-тің тікелей катализіне тәуелсіз ферроптозды баса алатынын көрсетті. N-миристоилдену FSP1-дің мембраналарға орналасуын қолдайды. Фермент NAD(P)H пайдаланып, убихинонды липид пероксил радикалдарын ұстайтын убихинолға тотықсыздандырады:
FSP1 тотықсызданған CoQ-ды ұстап тұрады, ал GPX4 гидропероксидтерді тотықсыздандырады: олар тізбектің әртүрлі сатыларын бақылайды. Бір жол белгілі жасушада екіншісіне тәуелділікті азайтуы мүмкін, бірақ әр тінде толық өтемге кепіл болмайды.
Мевалонат жолы CoQ изопрендік бірліктерінің синтезіне және Sec-тРНҚ модификациясына қатысады. Сондықтан араласу бірнеше қорғаныш механизмін бір мезгілде өзгерте алады. Тәжірибедегі статинге сезімталдық тағайындалған емді тоқтатуға немесе статинді клиникалық ферроптоздың дәлелденген себебі деуге негіз емес. Эндогенді CoQ қызметі, қоспа қабылдау және емдік пайда арасындағы айырмашылық коэнзим Q10, убихинол және клиникалық шектеулер туралы материалда қарастырылған.
Ішкі митохондрия мембранасындағы дигидрооротатдегидрогеназа (DHODH) пиримидин синтезі кезінде дигидрооротатты оротатқа тотықтырып, электрондарды CoQ қорына береді. Mao және әріптестерінің 2021 жылғы моделінде бұл ағын тотықсызданған CoQ-ды сақтап, GPX4-пен қатар митохондриялық липид тотығуын шектеген.
Қорғаушы маңыз митохондрия күйі мен басқа жолдарға тәуелді. DHODH тежегіші пиримидин синтезін де бұзады, сондықтан байқалған әсерді автоматты түрде тек ферроптозға телуге болмайды. Пиримидинмен қамтамасыз етуді қалпына келтіру және липид зақымын бөлек өлшеу механизмдерді ажыратуға көмектеседі. Кардиолипин митохондрия мембранасына маңызды, бірақ DHODH-ты тек кардиолипин гидропероксидтерін тікелей тотықсыздандыратын фермент ретінде сипаттамау керек.
GCH1 GTP-ден тетрагидробиоптерин (BH₄) синтезін бастайды. Kraft және Soula-ның 2020 жылғы зерттеулері бұл жүйені ферроптозға төзімділікпен байланыстырды. BH₄ радикал ұстауға қатыса алады; липид құрамы мен басқа антиоксиданттық жүйелермен әрекеттесу де өзгереді.
BH₄ тотығуы биоптерин қорының қалпына келуін, соның ішінде тиісті жолдағы DHFR және NADPH қатысуын ескеруді қажет етеді. Синтез, регенерация және орналасу қорғанысты бірге анықтайды. Бұл нәтижелер BH₄, CoQ немесе GSH-ті әмбебап өзара алмастырылатын дәрі етпейді.
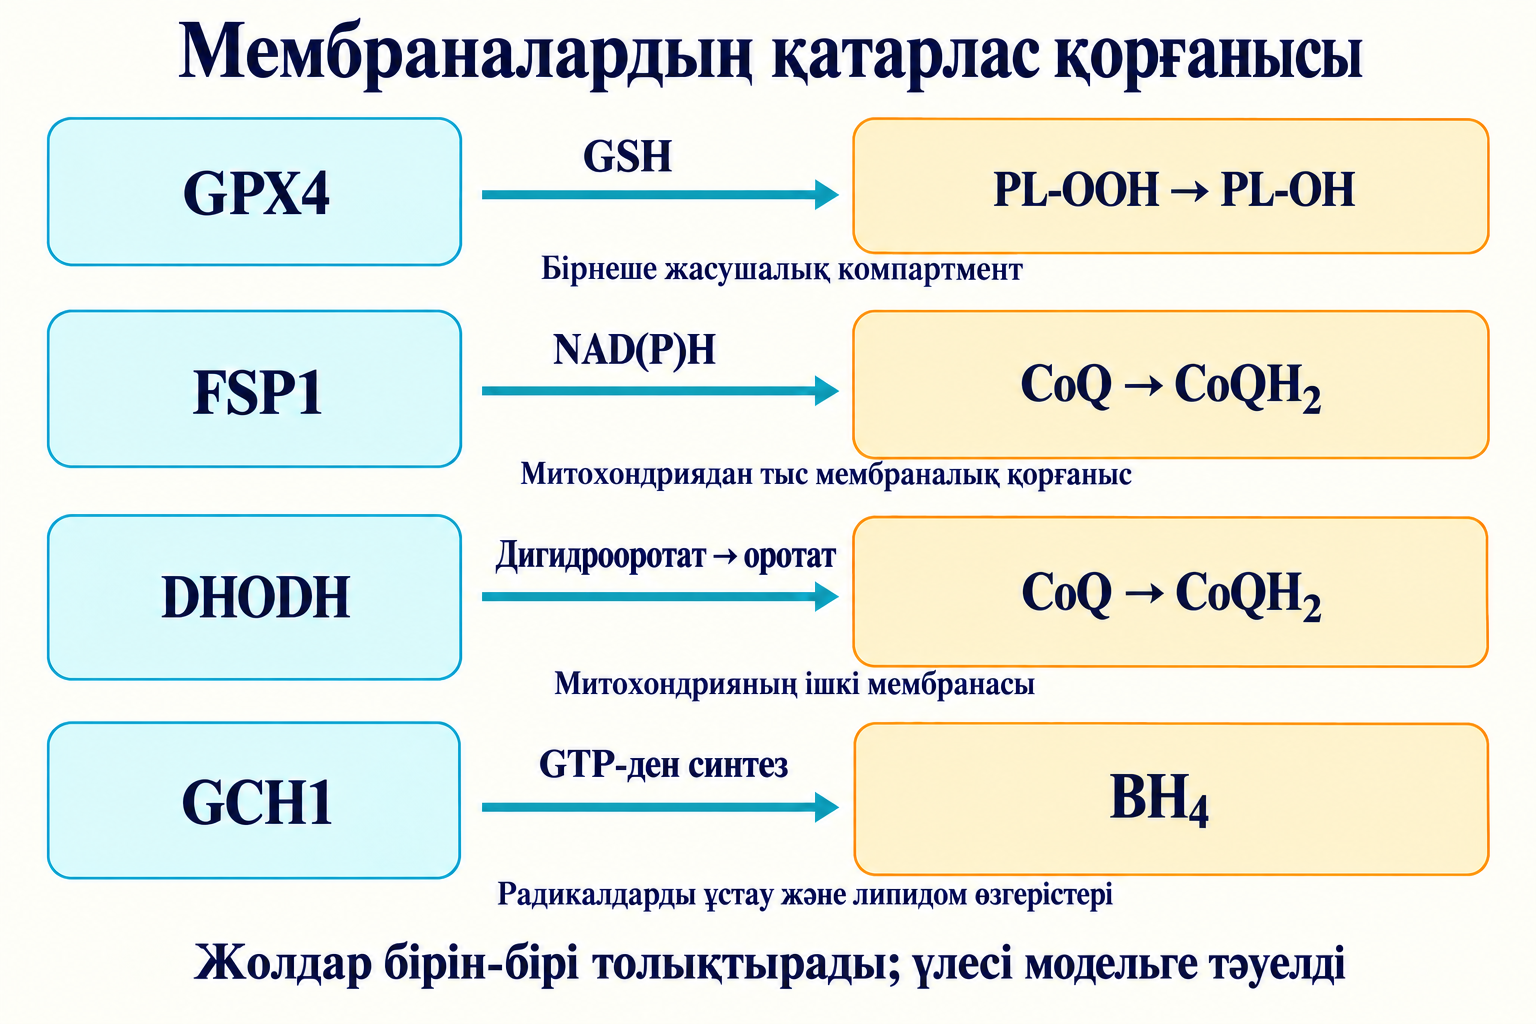
| Қорғаныс осі | Негізгі реакция/ағын | Маңызды орналасуы | Негізделген қорытынды |
|---|---|---|---|
| x_c⁻ → GSH → GPX4 | Цистеинмен қамтамасыз ету және PL-OOH тотықсыздануы | Плазма мембранасындағы алмастырғыш, GSH цитозольдік синтезі; бірнеше компартменттегі GPX4 | Көптеген модельдердегі негізгі тәуелділік; сезімталдық балама қамтамасыз ету мен қорғанысқа тәуелді |
| FSP1 → CoQH₂ | CoQ тотықсыздануы және радикал ұстау | Митохондриядан тыс қорғаныс үшін мембраналық орналасу маңызды | Зерттелген модельдерде қатарлас қорғаныс анықталған |
| DHODH → CoQH₂ | CoQ тотықсыздануымен ұштасқан дигидрооротат тотығуы | Митохондрияның ішкі мембранасы | Жергілікті қорғаныс пен пиримидин синтезімен байланыс |
| GCH1 → BH₄ | Биоптерин синтезі, радикал ұстау және липидом өзгеруі | Компоненттер мен субстраттардың таралуына тәуелді | GPX4-тің клиникалық алмастырушысы емес, қосымша жүйе |
Мида оттекке жоғары сұраныс, PUFA-ға бай мембраналар және темірдің біркелкі емес таралуы ұштасады. Паркинсон және Альцгеймер ауруларын зерттеуде темір жиналуы, GSH өзгеруі, липид тотығуы және нейрон зақымы қарастырылады. БАС зерттеулерінде де темір, SOD1/TDP-43 ақуыздары және мотонейрон осалдығы зерттеледі. Тышқанда Gpx4-ті шартты жою немесе эксперименттік тежегішпен қорғау механизмнің модельдегі рөлін анықтауға көмектеседі, бірақ оның адамдағы бүкіл ауруды түсіндіретінін дәлелдемейді.
FAIRPARK-II-дің теріс клиникалық нәтижесі (Devos және әріптестері, 2022) ерекше маңызды. Зерттеуге бұрын леводопа алмаған, Паркинсон ауруының ерте сатысындағы 372 адам қатысты. 36 аптада жалпы MDS-UPDRS көрсеткіші деферипронмен 15,6 балға, плацебомен 6,3 балға нашарлады; айырма 9,3 бал болды (95% СА 6,3–12,2). МРТ бойынша темір деферипрон тобында көбірек азайғанымен, клиникалық пайда болмады. Ауыр жағымсыз құбылыстар арасында агранулоцитоз және нейтропения болды.
Бұл нәтиже суррогат маркердің шектеуін көрсетеді: ми аймағындағы темірді азайту қызметті жақсартуға тең емес. Ол ферроптоздың кез келген ықтимал рөлін жоққа шығармайды, бірақ темірді жою Паркинсон ауруын автоматты емдейді деген ұғымға қайшы. Араласуды тек биохимиялық нысанаға әсерімен емес, клиникалық нәтижесі және қауіпсіздігімен бағалау керек.
Ишемия энергиямен қамтамасыз етуді және редокс-тепе-теңдікті өзгертеді; реперфузияда оттектің қайта келуі қолжетімді темір болғанда липид тотығуын күшейтуі мүмкін. Ферроптозды тежеу эксперименттік модельдерде миокард, бүйрек және басқа тіндер зақымын азайтқан. Әсер шамасы хаттамаға тәуелді: бір тәжірибедегі азаю пайызын барлық инфаркт, инсульт немесе трансплантацияға көшіруге болмайды.
Доксорубицин кардиоуыттылығын зерттеулер, соның ішінде Fang және әріптестерінің 2019 жылғы жұмысы, темір мен липид тотығуын қамтиды. HMOX1 реттелуі, гем ыдырауы және митохондриялық өзгерістер қатыса алады. Доксорубицин басқа механизмдермен де әсер етеді; жеке модельде жасушаларды құтқару пациентте кардиомиопатияның толық алдын алуды дәлелдемейді.
Донор ағзаның суық ишемиясы және кейінгі реперфузиясы ATP-тәуелді алмасуды бұзып, зақым жинақталуына мүмкіндік береді. Перфузиялық ортадағы липид радикал ұстағыштарын зерттеу трансляциялық тұрғыдан қызықты. Тінді тәжірибеде сақтау, трансплантаттың клиникалық жарамдылығы және ағзаның ұзақ мерзімді қызметі бөлек растауды қажет етеді. Зақымданған липидтер туа біткен иммунитетке әсер етуі мүмкін, бірақ трансплантациядан кейінгі қабынуды тек ферроптозбен түсіндірмеу керек.
Linkermann және Friedmann Angeli-дің 2014 жылғы жұмыстары бүйрек түтікшелері зақымындағы ферроптозды зерттеді. Gpx4 жоғалуы, ишемия және темірмен қамтамасыз ету жағдайлары әртүрлі сезімталдық қалыптастырады; липроксстатин-1 тәжірибелік қорғаушы құрал ретінде қолданылды. Рабдомиолиз кезінде миоглобин және гемдік темір тамырлық, түтікшелік факторлармен қатар күрделі бүйрек зақымының бір бөлігі болады.
Бауыр ауруларында темір шамадан тыс жиналуы, метаболизм бұзылыстары және тотығу зақымы қатар болуы мүмкін, бірақ гемохроматоз, MASH және уытты зақым — бір ферроптоздық диагноз емес. Парацетамол артық дозасында NAPQI GSH жұмсайды; митохондриялық стресс пен некроздық зақым да маңызды. Тек GSH сарқылуына қарап барлық зақымды GPX4-тәуелді ферроптоз деуге немесе қалыптасқан шұғыл емді эксперименттік радикал ұстағыштармен алмастыруға болмайды.
Viswanathan және Hangauer-дің 2017 жылғы жұмыстары мезенхималық күйдегі кейбір жасушалар мен дәрі әсеріне төзімді персистерлердің GPX4-ке тәуелділігін анықтады. ZEB1, липид құрамы және PUFA дайындайтын ферменттер өзгеруі липид тотығуына осалдық қалыптастыруы мүмкін. Бұл қалыпты терапиядан кейін тірі қалған жасушаларға әсер ету жолдарын зерттеуге негіз береді.
Осалдық барлық ісікте бірдей емес және қалыпты тінге қатысты таңдамалылыққа кепіл болмайды. Тежегішті жеткізу, химиялық тұрақтылық, көтерімділік және қатарлас қорғаныс қолдануға жарамдылықты анықтайды. Осы контексте ашық жасушалы бүйрек карциномасындағы VHL жоғалуы мен липид алмасу ерекшеліктері де зерттеледі; жалғыз мутация сезімталдық өлшемін алмастырмайды.
Ubellacker және әріптестері 2020 жылы меланома модельдерінде лимфалық орта таралатын жасушаларды ферроптоздан қорғай алатынын көрсетті. Липид құрамы, соның ішінде олеат, GSH және темір қолжетімділігі лимфа мен қан арасында өзгеше; MUFA енгізілуі жасушалардың кейінгі төзімділігін арттыра алады. Бұл ортаның метастазға ықпалын көрсетеді, бірақ әр қатерлі ісікке ортақ ереже немесе метастазды бақылау мақсатымен тағамды өзгертуге негіз емес.
Ферростатин-1 және липроксстатин-1 ферроптоздың эксперименттік тежегіштері ретінде кең қолданылады. Липофильді радикал ұстаушы антиоксиданттар (RTA) ретінде олар тізбекті тотығудың таралуын баяулатады. LOO• ұсталуы тізбекті жалғастыруға қабілеті төмен антиоксидант радикалын түзеді; бұл GPX4-тің PL-OOH-ты каталитикалық тотықсыздандыруымен бірдей емес.
Кинетикалық тұрақтылар, тиімді концентрациялар және жартылай шығарылу мерзімі ортаға, түрге, енгізу жолына және қосылыс құрылымына тәуелді. Фармакологиялық жасуша құтқару механизмді тексеруге көмектеседі, бірақ мембранаға қолжетімділік пен жағымсыз әсерді ескеру қажет. Fer-1 және Lip-1 мұнда инфаркт, нейродегенерация немесе қартаюдың алдын алатын қолжетімді стандартты дәрілер ретінде берілмейді.
Дефероксамин, деферазирокс және деферипрон темірдің артық жиналуының белгілі жағдайларында медицинада қолданылады. Енгізу, таралу және қауіпсіздік бейіні әртүрлі; олар «тотығу стрессіне» қарсы өзара алмастырылатын құрал емес. Деферазирокс үшін бүйрек пен бауыр қызметіне назар керек; деферипрон нейтропения және агранулоцитоз қаупімен байланысты, сондықтан емге сай гематологиялық мониторинг қажет. Дефероксаминнің де өз қауіптері, соның ішінде орынсыз қолдану мен темірді шамадан тыс жою асқынулары бар.
Физиологиялық қажет темірді жою зиян келтіруі мүмкін. Көрсетілім, доза және бақылау анықталған ауру мен нақты препаратқа тәуелді. Атап айтқанда, FAIRPARK-II теріс нәтижелері деферипронды Паркинсон ауруының профилактикалық антиферроптоздық емі ретінде қолдамайды. Жағымсыз құбылыстар жиілігін бір популяциядан барлық басқа популяцияға жалпылауға болмайды.
Селен Sec-құрамды ақуыздар синтезіне қажет, цистеин мен глицин GSH-ті қамтамасыз етеді. Бұл фактілер селен, NAC, убихинол және астаксантиннен тұратын біріктірілген «антиферроптоздық стек» сау адамдарда немесе пациенттерде тиімді екенін дәлелдемейді. Берілген дереккөздерде нейродегенерация, жүрек зақымы немесе өмір ұзақтығы нәтижелерімен осы комбинацияның клиникалық сынағы жоқ.
Анықталған селен тапшылығын түзету жеткілікті тұтыну кезіндегі қосымша қабылдаудан өзгеше. Артық мөлшер уытты, ал сарысулық концентрация формаға, таралуға және үлгі алу жағдайына тәуелді. 110–130 мкг/л деңгейін GPX4 емінің әмбебап нысанасы деп жариялауға болмайды. Органикалық және бейорганикалық формалар әртүрлі метаболизмнен өтеді; аскорбатпен зертханалық химия тиісті дерексіз әр клиникалық жағдайда қабылдаудың міндетті аралығын анықтамайды.
N-ацетилцистеин (NAC) цистеин бере алады және нақты медициналық көрсетілімдермен қолданылады. Әсері жеткізілуге, метаболизмге және бастапқы күйге тәуелді; плазмадағы прекурсорды көбейту қажетті компартментте GSH қалпына келуіне кепіл емес. GSH эфирлері жеткізу модельдерінде қолданылады, SAMe транссульфурациямен байланысты; бұл механизмдер еркін таңдалған емдік дозаларды не өнімдердің теңдігін растамайды.
CoQ мембрана редокс-алмасуына қатысады, бірақ ішілетін убихинолды FSP1 немесе DHODH үшін кепілді электрон доноры деуге болмайды: ферменттер CoQ-ды өз электрон көздерімен тотықсыздандырады, ал қоспаның тиісті қорға жеткізілуі дәлелді қажет етеді. Астаксантин, токоферолдар және токотриенолдар липофильді антиоксиданттар ретінде зерттеледі; қосқабатта орналасу мен радикал ұстау клиникалық ферроптоз алдын алуды дәлелдемейді. Әр араласудың көрсетілімін, қауіпсіздігін және ағымдағы еммен әрекеттесуін, әсіресе онкологияда, бағалау қажет.
C11-BODIPY 581/591 жасушалық тәжірибелерде қызыл/жасыл флуоресценция қатынасының өзгеруі арқылы тотығуды бағалауға қолданылады. Ол тотығатын ортаны көрсетіп, бояу, жарықтандыру және талдау жағдайларына тәуелді. Оның сигналы дербес ферроптоздық өлімді дәлелдей алмайды.
F₂-изопростандар, MDA және 4-HNE аддукттары липид тотығуын бағалауға көмектеседі, бірақ тек осы механизмге тән емес. Нақты тотыққан фосфолипидтерді масс-спектрометриялық талдау субстрат туралы егжей-тегжейлі мәлімет береді. Өнімді дәл өлшеудің өзі функционалдық және себептік растауды алмастырмайды.
Сарысулық селен, эритроциттік глутатионпероксидаза белсенділігі және тұтас қандағы GSH/GSSG физиологиялық күйдің әртүрлі аспектілерін бағалайды; эритроцит GPX белсенділігі ми мембранасындағы GPX4-тің тікелей талдауы емес. Ферритин, трансферрин қанығуы және T₂*/R₂* МРТ тиісті көрсетілімдермен темір алмасуын/жиналуын бағалайды. Олардың комбинациясы да, трансферрин қанығуының тұрақты мәні де «ферроптоздық аурудың» расталған әмбебап диагностикалық бейінін жасамайды.
Молекулалық осьтерді салыстыру эксперименттік құралдарды рұқсат етілген емнен ажыратқанда пайдалы:
| Ось/үдеріс | Араласу нені өзгертеді | Әдеттегі эксперименттік құрал | Тағы нені тексеру қажет |
|---|---|---|---|
| SLC7A11/GSH | Цистеин және тотықсыздандыру ресурстарымен қамтамасыз ету | Эрастин, IKE; SLC7A11 генетикалық өзгерістері | Орта құрамы, транссульфурация, цистеин қолжетімділігі және нақты GSH |
| GPX4 | Липид гидропероксидтерінің тотықсыздануы | RSL3, ML162, ML210; Gpx4 өзгерту | Нысанаға әсер, липид зақымы, жасуша құтқару және қалыпты тін уыттылығы |
| ACSL4/LPCAT3 | PUFA-құрамды фосфолипид дайындау | Генетикалық араласулар; таңдамалылығы шектеулі фармакологиялық құралдар | Нақты липидом және май қышқылдарын енгізудің балама жолдары |
| ALOX15/PEBP1 | Тиісті модельде тотыққан липидтердің ферменттік түзілуі | Кешен компоненттерін өзгерту, LOX тежегіштері | Ферментке тікелей әсерді радикал ұстаудан бөлек бағалау |
| NCOA4/ферритин | Қордағы темірді жұмылдыру | NCOA4 өзгерту және лизосомалық ағын талдауы | Ферритин ыдырауы, жергілікті LIP және аутофагияның арнайы емес әсерлері |
| FSP1/CoQ | Мембраналық радикал ұстағышты регенерациялау | FSP1 өзгерту, iFSP1 және ұқсас эксперименттік қосылыстар | Орналасу, CoQ күйі және GPX4-ке тәуелділік |
| DHODH | Пиримидин синтезі және CoQ жергілікті тотықсыздануы | Зерттеудегі бреквинар және басқа DHODH тежегіштері | Пиримидин тапшылығы мен митохондриялық липид тотығуының жеке үлестері |
| GCH1/BH₄ | Биоптерин қоры және липид төзімділігі | Генетикалық өзгерістер, эксперименттік тежегіштер | BH₄ регенерациясы, липидом және биоптериннің ферроптоздан тыс қызметтері |
Жұмысты бағалаудың практикалық реті нәтиженің қайда алынғанын сұраудан басталады: жасушасыз жүйеде, жасуша мәдениетінде, жануарда немесе пациентте ме? Содан кейін нақты өлім өлшенгенін және оның липид тотығуы, темір мен тиісті қорғаныш жолымен байланысын анықтайды. Одан әрі араласудың таңдамалылығын, қолжетімді экспозицияны және қалыпты тінге салдарын бағалайды. Клиникалық тұжырым ақырында пациентке маңызды нәтижелер мен қауіпсіздікті талап етеді.
Цитопротекцияны ісікке қарсы ферроптоз индукциясынан ажырату ғылыми тұрғыдан құнды. Бірақ «биомаркер жоғары → хелатор, селен және радикал ұстағыш тағайындау» реті расталған клиникалық алгоритм емес. Диагностика мен ем нақты ауруға сәйкес болуы керек; эксперименттік стратегия тиісті бағалаудан кейін ғана терапияға айналады.
GPX4 мембраналарды жалғыз қорғамайды. Белсенділігіне дұрыс селенопротеин синтезі, GSH жеткізу, NADPH-тәуелді регенерация және липид субстраттарына қолжетімділік қажет. ACSL4/LPCAT3 және басқа үдерістер мембранаға қандай тізбек кіретінін анықтайды; темір мен тотығу жолдары зақым түзілуін, FSP1, DHODH және GCH1/BH₄ жасушаның радикалдық тізбекті шектеу қабілетін анықтайды.
Сондықтан бір тежегіш әртүрлі жасуша мен ортада әртүрлі әсер етеді. Ферроптоз тін зақымының жекелеген модельдерін түсіндіруге және кей ісік күйлерінің осалдығын табуға көмектеседі. Бұл механизмдерді медицинаға көшіру жалпылама «антиоксиданттық қорғаныс» уәдесін емес, нақты нысананы, жергілікті әсерді, тексерілген клиникалық нәтижені және қолайлы қауіпті талап етеді.
Бұл берілген мәтін мен библиографияның редакциялық бейімделуі, жүйелі шолу емес. Бастапқы жергілікті пакетте сақталған мақала денесі немесе қабылданған иллюстрациялар болмаған. Механистік дәлел, жануар модельдері және клиникалық нәтижелер ажыратылды; негізсіз әмбебап сандық шектер мен өзін-өзі емдеу сызбасы анықталған факт ретінде көшірілмеді.
2026 жылғы 8 қазанда үш нақты қайшылық іріктеп тексерілді: Ingold зерттеуіндегі Sec-ті Cys-пен алмастыру нәтижесі, митохондриялық GSH импортына SLC25A39 қатысуы және FAIRPARK-II клиникалық нәтижесі. Соңғысының DOI-ы түзетіліп, SLC25A39 туралы қажетті бастапқы зерттеу қосылды. Әдебиетті толық қайта іздеу, әр сілтемені аудиттеу немесе ресми GRADE бағалауы жүргізілген жоқ. Ортақ дереккөздер берілген библиография мен осы нысаналы тексеруді көрсетеді; тізімге енгізу әр тұжырым әр зерттеудің толық мәтінімен салыстырылған дегенді білдірмейді.
Материалды аяқтау кезінде, 2026 жылғы 8 қазанда, купроптозбен салыстыру бөлек қалпына келтіріліп, Tsvetkov және әріптестерінің 2022 жылғы бастапқы жұмысы Broad Institute авторлық репозиторийінен нысаналы оқылды.
GSH пайдаланып күрделі липид гидропероксидтерін тотықсыздандырады және мембрана зақымының жиналуын шектейді.
Жоқ. Бұл маркерлер арнайы емес; зерттеуге үйлесімді функционалдық, липидтік және себептік дәлелдер қажет.
Автоматты түрде алмастырмайды. Субстрат қажеттілігі әмбебап қоспа комбинациясының пайдасын дәлелдемейді; тапшылық түзету мен емнің жеке көрсетілімдері және қауіптері бар.
FAIRPARK-II-де МРТ бойынша темір азайса да, белгілер плацебодан көбірек нашарлады.
Кей ісік күйлері оның қорғанысын жоғалтуға сезімтал. Қолданылуы таңдамалылыққа, жеткізуге, қатарлас жолдарға және қалыпты тін қауіпсіздігіне тәуелді.