
GPX4 и ферроптоз: глутатион, селен и защита мембранных липидов
Как GPX4 восстанавливает гидропероксиды липидов, почему важны GSH и селен, как работают параллельные защитные пути и где находятся клинические границы.
Глутатионпероксидаза-4 (GPX4) восстанавливает гидропероксиды фосфолипидов и тем самым удерживает перекисное окисление мембран ниже уровня, при котором клетка теряет жизнеспособность. Этот фермент связывает обмен селена, цистеина и глутатиона с составом липидов, доступностью железа и работой митохондрий. Ферроптоз возникает при определённом сочетании окисляемых субстратов, каталитически доступного железа и недостаточной защиты; он не равнозначен любому окислительному стрессу.
Механизмы GPX4 дают основания исследовать защиту тканей и уязвимость опухолей. Однако клеточный эффект ингибитора, изменение маркера окисления и улучшение состояния пациента — разные уровни доказательств. Ни один из них нельзя подменять другим.
1. Что отличает ферроптоз от других способов гибели
От наблюдения к проверяемому механизму
Термин «ферроптоз» был введён Dixon и коллегами в 2012 году для железозависимой регулируемой гибели, которую в исследованных клетках вызывал эрастин. Работа Yang и коллег в 2014 году связала чувствительность к этому процессу с GPX4. Речь идёт не о новой разновидности апоптоза: центральным повреждением служит накопление окисленных мембранных липидов. При этом пути гибели способны сосуществовать в одной ткани, а результат зависит от клеточной модели, питательной среды и времени измерения.
| Процесс | Основная исследуемая система | Что помогает различать механизмы |
|---|---|---|
| Апоптоз | Каспазы, BCL-2, митохондриальный выход цитохрома c | Активация каспаз, морфология ядра и соответствующее подавление пути |
| Некроптоз | RIPK3 и MLKL в подходящем контексте | Фосфорилирование/активация MLKL и генетическое подтверждение |
| Пироптоз | Газдермины и воспалительные протеазы | Расщепление газдерминов, образование пор, воспалительные сигналы |
| Ферроптоз | Железо, окисление фосфолипидов, GPX4 и параллельная защита | Совокупность липидных, функциональных и генетических результатов, включая предотвращение гибели подходящими ингибиторами |
| Купроптоз | Медь и липоилированные митохондриальные белки | Проверка медьзависимости и повреждения белков; отличается от железозависимого окисления липидов |
Купроптоз — отдельный медьзависимый механизм. В работе Tsvetkov и коллег 2022 года медь связывалась с липоилированными компонентами цикла трикарбоновых кислот, включая DLAT; агрегация этих белков и потеря железосерных белков сопровождались протеотоксическим стрессом. В исследованных клетках важны митохондриальное дыхание, FDX1 и липоилирование. Это не позволяет свести любую токсичность меди к купроптозу или переносить селективность экспериментальных ингибиторов на все ткани.
Отсутствие эффекта одного ингибитора каспаз не доказывает ферроптоз. Так же недостаточны отдельное повышение MDA, снижение GSH или окраска одним зондом. Более убедительны согласованные данные об окислении липидов, железозависимости, спасении клеток ловушками липидных радикалов и изменении чувствительности при вмешательстве в GPX4 или липидный метаболизм. Ингибиторы тоже имеют ограничения селективности, поэтому независимые подходы важны.
Как окисление меняет мембрану
Гидропероксидная группа делает участок жирнокислотной цепи более полярным. Окисленная цепь может перемещаться ближе к поверхности бислоя, менять упаковку соседних липидов и создавать дефекты проницаемости. Последующие реакции дают усечённые липиды и реакционноспособные альдегиды. Накопление этих изменений нарушает барьерную функцию мембран и может приводить к их разрыву.
Митохондрии в некоторых моделях ферроптоза становятся меньше, теряют кристы и приобретают плотные мембраны. Эти признаки не являются универсальной или самостоятельной диагностикой. Размер пор, доля окисленных липидов и степень истончения бислоя зависят от модели: их нельзя превращать в единый порог гибели для всех клеток. Митохондриальный метаболизм также нужен не каждому экспериментальному варианту ферроптоза в одинаковой степени.
2. Почему GPX4 отличается от других глутатионпероксидаз
Семейство GPX и доступ к сложным липидам
У человека описаны GPX1–GPX8. Они различаются локализацией, каталитическим остатком, доступными субстратами и партнёрами восстановления. Для GPX4 особенно важна способность восстанавливать гидропероксиды сложных липидов, в том числе фосфолипидов, без предварительного отделения жирной кислоты от мембраны. Именно эта реакция делает фермент центральным ограничителем ферроптоза.
| Представитель | Особенность | Ограничение сравнения |
|---|---|---|
| GPX1 | Селенопротеин, работающий с растворимыми пероксидами в клетке | Активность против H₂O₂ не равнозначна защите мембранных фосфолипидов |
| GPX2 | Селенопротеин, заметный в эпителиальных тканях | Экспрессия и защитный эффект зависят от ткани |
| GPX3 | Секретируемая внеклеточная глутатионпероксидаза | Не заменяет внутриклеточную GPX4 |
| GPX4 | Мономерный селенопротеин с доступом к липидным гидропероксидам | Его значение определяется также субстратами и параллельными системами |
| GPX5 и GPX6 | Связаны, в частности, с репродуктивными/сенсорными тканями; GPX5 содержит Cys, человеческая GPX6 — Sec | Свойства GPX6 отличаются между видами |
| GPX7 и GPX8 | Cys-содержащие белки эндоплазматического ретикулума, связанные с окислительным сворачиванием | Название семейства не означает одинаковое использование GSH |
Изоформы и репродуктивные функции
Варианты транскрипции и начала трансляции обеспечивают цитозольную, митохондриальную и ядерную формы GPX4. Направляющие последовательности меняют распределение белка; конкретная длина и нумерация остатков зависят от рассматриваемой формы. Цитозольная GPX4 обеспечивает широко распространённую защиту липидов, митохондриальная участвует в защите соответствующего компартмента и в созревании сперматозоидов.
Во время сперматогенеза GPX4 выполняет не только обычную пероксидазную функцию. Митохондриальная форма участвует в формировании структур средней части сперматозоида, а ядерная связана с упаковкой хроматина и окислением белковых тиолов. Эти роли следует различать: ядерную форму нельзя автоматически считать единственным строителем митохондриальной капсулы.
Как селен превращается в каталитический селенцистеин
Селенцистеин (Sec) включается в белок во время трансляции. Кодон UGA, обычно означающий остановку, прочитывается как Sec при наличии соответствующей системы и элемента SECIS в 3′-нетранслируемой области мРНК. В процессе участвуют специализированная тРНК^[Ser]Sec, SBP2 и фактор eEFSec.
Сначала SerRS присоединяет серин к этой тРНК. PSTK фосфорилирует связанный серин с затратой ATP, затем SEPSECS превращает его в Sec, используя селенфосфат, образованный при участии SEPHS2. Только после этой подготовки Sec-тРНК может доставить аминокислоту к рибосоме. Поступление селена поэтому не действует как мгновенное присоединение свободного «кофактора» к уже готовой GPX4.
При недостатке селена синтез разных селенопротеинов меняется неодинаково. Эта иерархия зависит от регуляции мРНК, трансляции и потребностей ткани; её нельзя описать одной неизменной долей сохранённой GPX4. Пищевой контекст и риск избытка разобраны в статье о функциях селена и его безопасности.
Sec, Cys и устойчивость к переокислению
Селенол и тиол различаются кислотностью и реакционной способностью; значения pKa свободных аминокислот не задают автоматически свойства активного центра белка. В GPX4 окружение Sec, включая Gln, Trp и Asn, помогает организовать каталитические реакции. Важен и доступ липидного субстрата к ферменту, а не только химия одного атома.
В опытах Ingold и коллег замена Sec на Cys сохраняла достаточно активности для нормального эмбриогенеза мышей, но делала фермент и клетки более уязвимыми к пероксидному стрессу. Выживание определённых интернейронов зависело от Sec-содержащей GPX4; возникали тяжёлые судороги. Следовательно, замену Sec на Cys нельзя приравнивать к полному нокауту Gpx4 и утверждать неизбежную гибель всех эмбрионов. Устойчивость Sec к переокислению также не означает, что GPX4 не может быть инактивирована.
Каталитический цикл и цена восстановления
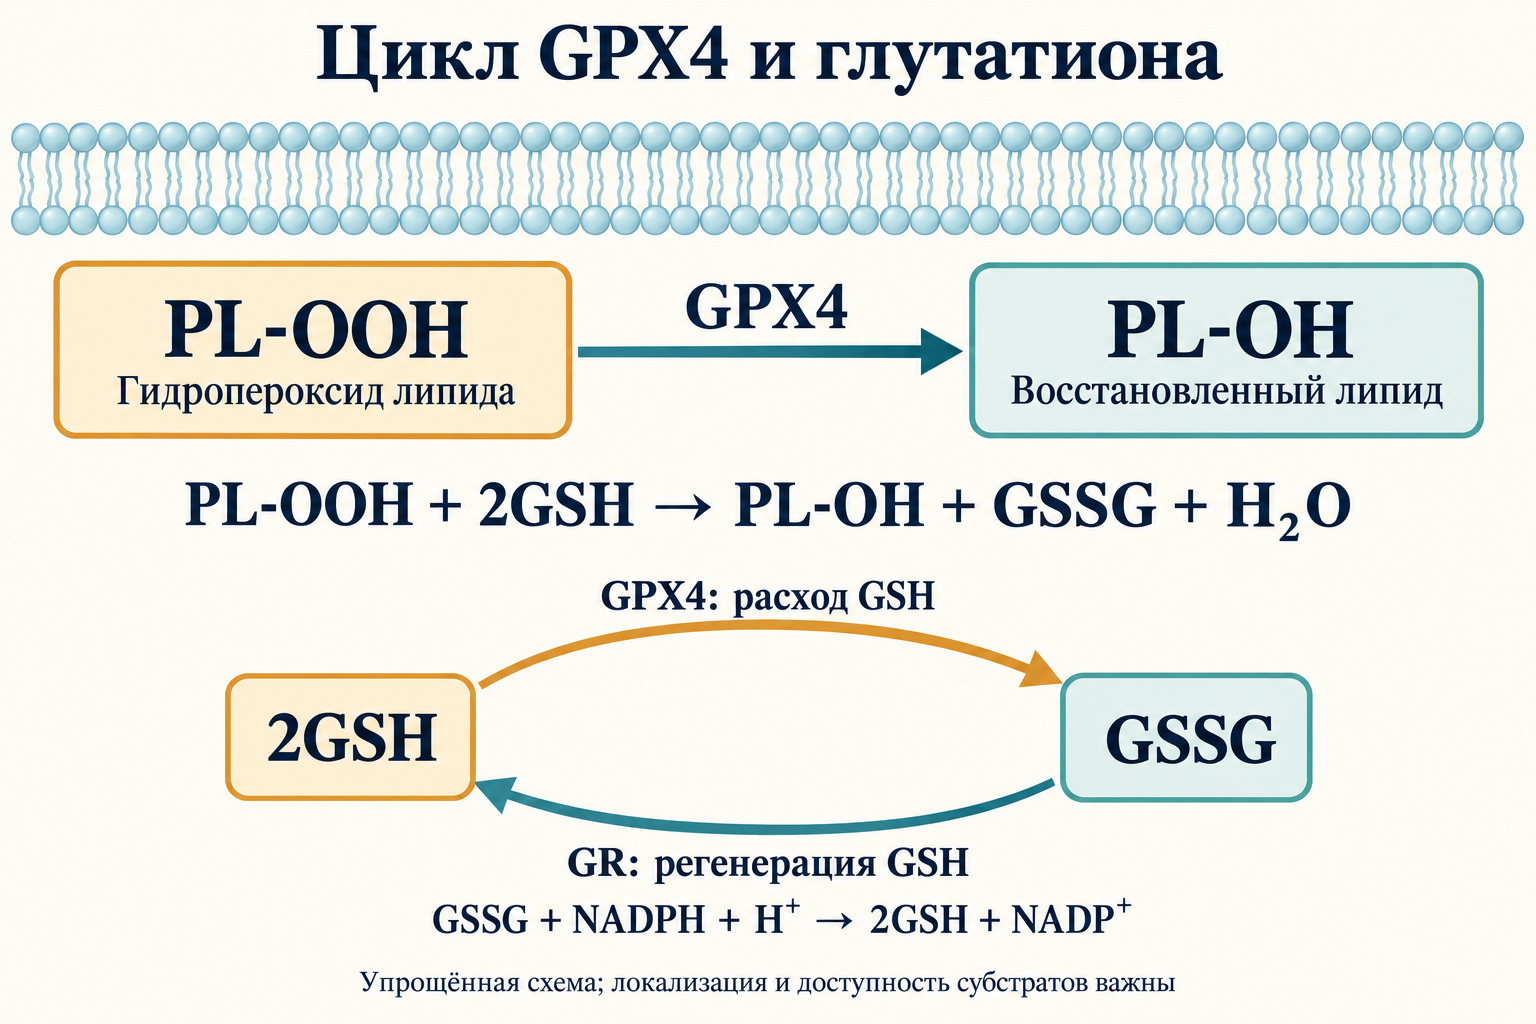
Обозначим гидропероксид фосфолипида как PL-OOH, восстановленный продукт — PL-OH, а активный фермент — Enz-Se⁻. Упрощённые стадии цикла:
Суммарно:
Глутатионредуктаза (GR) возвращает GSSG в восстановленную форму:
Таким образом, GPX4 расходует GSH, а поддержание цикла требует NADPH. Потоки зависят от концентраций нескольких субстратов, локализации и доступности фермента. Их нельзя свести к универсальному «нулевому Km» или к одной концентрации GSH. GPX4 убирает гидропероксидный субстрат, а липофильные ловушки радикалов преимущественно прерывают распространение радикальной цепи: эти действия дополняют друг друга.
3. Цистин, цистеин и глутатион: снабжение GPX4
Обменник system x_c⁻ и регуляция SLC7A11
System x_c⁻ образован лёгкой транспортной субъединицей SLC7A11 и тяжёлой SLC3A2, соединёнными дисульфидной связью. Он обменивает внеклеточный цистин на внутриклеточный глутамат в отношении 1:1. После импорта цистин восстанавливается до двух молекул цистеина; эта стадия тоже требует восстановительных ресурсов. Цистеин затем используется для синтеза GSH.
Повышенный внеклеточный глутамат способен затруднять импорт цистина, а нехватка цистина в среде меняет результат эксперимента. При дефиците аминокислот GCN2 фосфорилирует eIF2α и способствует ответу ATF4. Nrf2 через регуляцию системой KEAP1 поддерживает экспрессию ряда защитных генов, включая звенья обмена цистина и GSH. p53 может подавлять SLC7A11, но его влияние на ферроптоз зависит от клеточного контекста и других мишеней; это не универсальный переключатель «p53 включён — ферроптоз включён».
Две ATP-зависимые стадии синтеза GSH
GSH — трипептид γ-глутамил-цистеинил-глицин. Глутаматцистеинлигаза (GCL) состоит из каталитической GCLC и модифицирующей GCLM субъединиц; она образует γ-глутамилцистеин. Глутатионсинтетаза (GSS) присоединяет глицин:
Необычная γ-связь уменьшает доступность GSH для многих обычных пептидаз, но не делает молекулу неразрушимой: её обмен включает γ-глутамилтрансферазу и другие пути. GSH регулирует GCL по обратной связи; GCLM меняет кинетические свойства комплекса. Скорость синтеза определяется снабжением аминокислотами, ATP и регуляцией ферментов, поэтому увеличение одного предшественника не гарантирует увеличение защитного потока.
Компартменты GSH и митохондриальный импорт
Основной синтез происходит в цитозоле, откуда GSH поступает в другие компартменты. Для митохондрий это принципиально: их собственная мембрана ограничивает обмен, а восстановительные ресурсы и повреждение липидов локальны. Работа Wang и коллег 2021 года показала необходимость SLC25A39 для митохондриального импорта GSH в клетках млекопитающих. Старую атрибуцию прямого транспорта исключительно дикарбоксилатному и 2-оксоглутаратному переносчикам SLC25A10 и SLC25A11 нельзя считать установленной альтернативой этим данным.
В эндоплазматическом ретикулуме окислительная среда нужна для сворачивания белков и формирования дисульфидов. Но один показатель GSH/GSSG не описывает весь редокс-статус. Потенциал этой пары зависит от абсолютных концентраций, отношения [GSH]²/[GSSG] и pH; образец цельной крови не заменяет измерение в отдельной мембране или митохондрии. Универсального порога редокс-потенциала, который диагностировал бы ферроптоз у пациента, нет.
Почему разные индукторы нельзя считать взаимозаменяемыми
Эрастин и его производное IKE применяют для нарушения снабжения цистином; сульфасалазин также может влиять на system x_c⁻. Для сорафениба такой эффект зависит от модели: это многомишенный противоопухолевый препарат, а не универсально селективный ингибитор ферроптозной оси. При достаточных альтернативных источниках цистеина клетка может частично обходить блок обменника, например через транссульфурацию.
RSL3 и ML162 используют как прямые ингибиторы GPX4; ML210 — соединение с внутриклеточным превращением в реакционноспособный ингибитор. Эффективность и селективность зависят от химической структуры, концентрации и времени воздействия; ни одно из этих названий не означает готового безопасного лечения человека. FIN56 сочетает изменения GPX4 и обмена CoQ, FINO2 влияет на железо и липидное окисление с косвенным нарушением защиты GPX4. Различие точек приложения помогает построить эксперимент, но требует подтверждения фактической мишени и механизма гибели.
4. От состава мембраны к радикальной цепи
PUFA, MUFA и дейтерированные липиды
Полиненасыщенные жирные кислоты (PUFA) имеют бис-аллильные позиции, из которых сравнительно легко отщепляется водород. В арахидоновой кислоте (AA, 20:4) и адреновой кислоте (AdA, 22:4) таких уязвимых участков несколько. AA- и AdA-содержащие фосфатидилэтаноламины подробно изучены как субстраты ферроптозного окисления. Однако перечень не ограничен этими двумя кислотами или одним классом фосфолипидов: липидом и пути окисления различаются между клетками.
Мононенасыщенные жирные кислоты (MUFA), в том числе олеиновая, меняют состав мембран и могут уменьшать долю легко окисляемых PUFA. Здесь важны синтез через SCD1 и включение липидов при участии ACSL3. Это изменение субстратного пула, а не доказательство прямого перехвата всех радикалов молекулой MUFA. Насыщенные цепи менее подвержены этому пути окисления, но клетка с такими липидами не становится неуязвимой к любому повреждению.
Замена водорода дейтерием в бис-аллильных положениях может замедлять разрыв связи вследствие кинетического изотопного эффекта. Дейтерированные PUFA поэтому исследуют как способ снизить распространение липидного окисления. Это замедление, а не химическая невозможность реакции; величина эффекта, включение в ткани и клиническая польза требуют отдельных измерений.
ACSL4 и LPCAT3: подготовка субстрата
ACSL4 активирует ряд длинноцепочечных жирных кислот с предпочтением к определённым PUFA. После образования ацил-CoA фермент LPCAT3 участвует в повторном ацилировании лизофосфолипидов в цикле Ландса:
В исследованных моделях потеря ACSL4 меняет липидом и снижает чувствительность к определённым индукторам ферроптоза. Это важное причинное наблюдение, но не правило, что любая клетка без ACSL4 полностью защищена. Другие ферменты, доступные жирные кислоты и независимые пути образования окисляемых липидов могут менять зависимость.
Ферментативное начало: ALOX15 и PEBP1
Липоксигеназы вводят кислород в подходящие липидные субстраты. В работе Wenzel и коллег комплекс ALOX15/PEBP1 изменял субстратную направленность окисления и обеспечивал образование окисленных PE. PEBP1 известен также как регулятор сигнальных белков; его состояние и взаимодействия могут соединять сигнальную регуляцию с липидной химией.
Этот механизм не является обязательным единственным началом ферроптоза. В одних моделях значимы липоксигеназы, в других — неферментативные реакции и иные источники окисления. Подавление окисления соединением, названным «ингибитором LOX», само по себе не доказывает причинную роль LOX: некоторые такие вещества также перехватывают радикалы.
Инициация, распространение и повреждающие продукты
Обозначим исходный липид LH, радикал L•, пероксильный радикал LOO• и гидропероксид LOOH. Упрощённая цепь включает:
Первое уравнение показывает один способ образования реакционного радикала при участии железа; реальные реакции зависят от лигандов, среды и доступности металла. Последняя стадия передаёт повреждение соседнему липиду. GPX4 уменьшает запас гидропероксидов, способных подпитывать эту цепь; ловушки радикалов препятствуют её продолжению.
Распад окисленных липидов образует малоновый диальдегид (MDA), 4-гидроксиноненаль (4-HNE) и другие электрофильные продукты. Они модифицируют белки и могут менять работу ферментов и сигнальных систем. Это признаки липидного повреждения, но они не специфичны исключительно для ферроптоза. Их наличие требует объяснения источника, локализации и связи с фактической гибелью клеток.
5. Железо: доступность важнее общего количества
Трансферрин, эндосома и лабильный пул
Трансферрин переносит преимущественно Fe³⁺ и связывается с рецептором TfR1. После эндоцитоза подкисление эндосомы облегчает высвобождение железа; STEAP3 участвует в его восстановлении до Fe²⁺, а DMT1 — в переносе через мембрану эндосомы. Далее железо направляется к ферментам, митохондриям и запасам или пополняет лабильный пул.
Лабильный пул железа (LIP) — это обменное железо, связанное с относительно доступными лигандами, а не раствор свободных ионов без окружения. Его способность участвовать в окислительных реакциях зависит от координации и компартмента. Общее содержание железа, сывороточный ферритин и локальная каталитическая доступность не тождественны. Поэтому высокий ферритин сам по себе не доказывает ферроптоз и не определяет показание к хелатору.
IRP/IRE и ферритин
При низкой доступности железа белки IRP связывают элементы IRE в мРНК и меняют синтез белков хранения и транспорта. IRP1 может переключаться между IRE-связывающим состоянием и функцией аконитазы с железосерным кластером. Стабильность IRP2 связана с системой FBXL5 и состоянием клетки. Разное положение IRE в мРНК позволяет согласовать поступление железа с его хранением.
Ферритин — оболочка из 24 субъединиц FTH1 и FTL. FTH1 обеспечивает ферроксидазную активность, а комплекс удерживает минерализованное железо, снижая его доступность для нежелательных реакций. Максимальная вместимость оболочки не означает одинакового заполнения всех молекул. Запас полезен только в динамическом равновесии: железо нужно мобилизовать для нормального обмена, а избыток доступного металла может усиливать повреждение.
NCOA4 и ферритинофагия
NCOA4 распознаёт ферритин и участвует в его доставке к лизосомной деградации — ферритинофагии. Разрушение белковой оболочки высвобождает железо, которое может снова использоваться клеткой. Этот путь поддерживает физиологический обмен и в определённых условиях повышает чувствительность к ферроптозу.
Мобилизация запаса не означает неизбежного «взрывного выброса» и смерти: результат зависит от аутофагического потока, экспорта и утилизации железа, липидного состава и антиоксидантной защиты. Для эксперимента важно различать наличие NCOA4, фактическую деградацию ферритина и изменение доступного железа. Ингибирование лизосом влияет на множество процессов и не является избирательным клиническим выключателем ферритинофагии.
6. Параллельные системы защиты
FSP1 и восстановленный коэнзим Q
Работы Bersuker и Doll 2019 года показали, что FSP1, ранее известный как AIFM2, может подавлять ферроптоз независимо от непосредственного катализа GPX4. N-миристоилирование помогает локализации FSP1 на мембранах. Используя NAD(P)H, фермент восстанавливает убихинон до убихинола, который перехватывает липидные пероксильные радикалы:
FSP1 поддерживает восстановленный пул CoQ, а GPX4 восстанавливает гидропероксиды; это различные точки контроля цепи. Наличие одного пути может уменьшать зависимость от другого в конкретной клетке, но не гарантирует полноценную компенсацию во всех тканях.
Мевалонатный путь связан с синтезом изопреноидных звеньев CoQ и модификацией Sec-тРНК. Поэтому вмешательства в него могут одновременно затрагивать несколько защитных механизмов. Экспериментальная чувствительность к статину не является основанием отменять назначенный препарат или считать его доказанной причиной клинического ферроптоза. Разница между эндогенной функцией CoQ, добавкой и лечебным эффектом рассмотрена в статье о коэнзиме Q10, убихиноле и клинических границах.
DHODH: связь пиримидинов и митохондриальной мембраны
Дигидрооротатдегидрогеназа (DHODH) во внутренней мембране митохондрий окисляет дигидрооротат до оротата в синтезе пиримидинов и передаёт электроны пулу CoQ. В модели Mao и коллег 2021 года этот поток поддерживал восстановленный CoQ и ограничивал митохондриальное липидное окисление параллельно GPX4.
Значение защиты зависит от состояния митохондрий и других путей. Ингибитор DHODH одновременно нарушает синтез пиримидинов: наблюдаемый эффект нельзя автоматически приписать только ферроптозу. Восстановление пиримидинового снабжения и отдельные измерения липидного повреждения помогают разделить механизмы. Кардиолипин важен для митохондриальной мембраны, но DHODH не следует описывать как фермент, непосредственно восстанавливающий только его гидропероксиды.
GCH1, BH₄ и регенерация биоптерина
GCH1 запускает синтез тетрагидробиоптерина (BH₄) из GTP. Работы Kraft и Soula 2020 года связали эту систему с устойчивостью к ферроптозу. BH₄ способен участвовать в перехвате радикалов; также меняются состав липидов и взаимодействия с другими антиоксидантными системами.
Окисление BH₄ требует учёта восстановления биоптеринового пула, в том числе участия DHFR и NADPH в соответствующем пути. Синтез, регенерация и локализация определяют защитный эффект совместно. Эти данные не означают, что BH₄, CoQ или GSH можно считать универсально взаимозаменяемыми лекарствами.
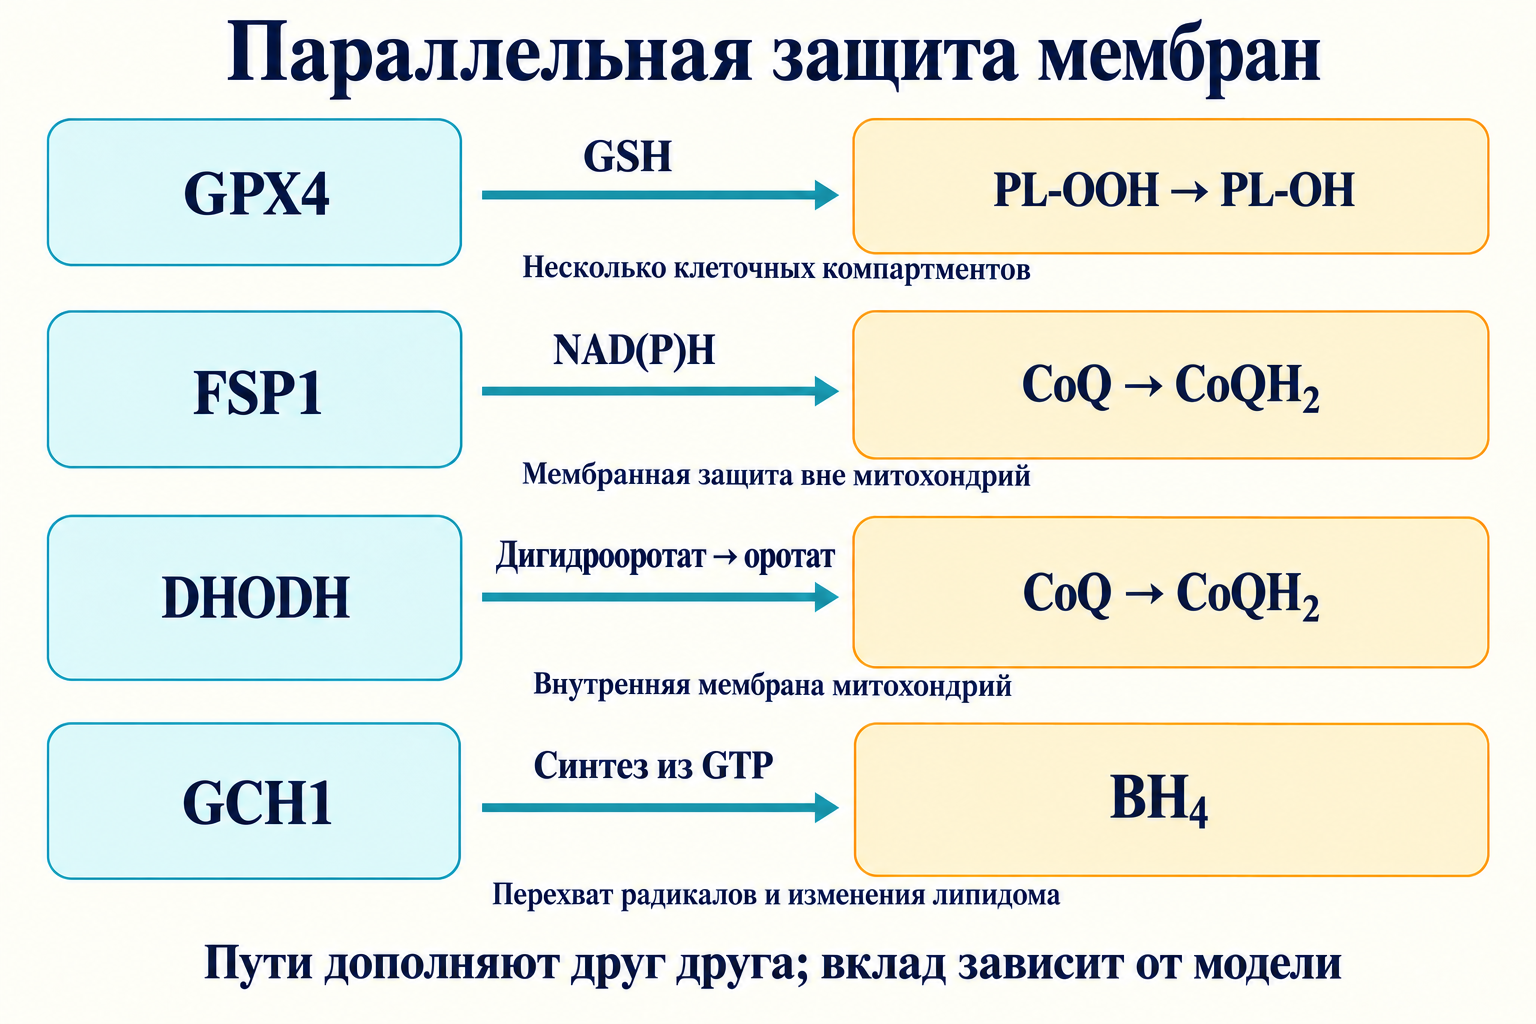
| Защитная ось | Основная реакция/поток | Значимая локализация | Какой вывод допустим |
|---|---|---|---|
| x_c⁻ → GSH → GPX4 | Снабжение цистеином и восстановление PL-OOH | Обменник плазматической мембраны, синтез GSH в цитозоле; GPX4 в нескольких компартментах | Центральная зависимость многих моделей; чувствительность зависит от альтернативного снабжения и защиты |
| FSP1 → CoQH₂ | Восстановление CoQ и перехват радикалов | Мембранная локализация, важная для защиты вне митохондрий | Параллельная защита, установленная в исследованных моделях |
| DHODH → CoQH₂ | Окисление дигидрооротата с восстановлением CoQ | Внутренняя мембрана митохондрий | Связь с локальной защитой и синтезом пиримидинов |
| GCH1 → BH₄ | Синтез биоптерина, радикальное улавливание и изменения липидома | Зависит от распределения компонентов и субстратов | Дополнительная система, не клиническая замена GPX4 |
7. Заболевания: где заканчивается модель и начинается клиника
Нейродегенерация и урок FAIRPARK-II
Мозг сочетает высокую потребность в кислороде, богатые PUFA мембраны и неоднородное распределение железа. При болезнях Паркинсона и Альцгеймера изучают накопление железа, изменения GSH, липидное окисление и повреждение нейронов. При БАС исследования также затрагивают железо, белки SOD1/TDP-43 и чувствительность мотонейронов. Условное удаление Gpx4 у мышей или защита клеток экспериментальным ингибитором помогают установить роль механизма в модели, но не доказывают, что он объясняет всю болезнь человека.
Особенно важен отрицательный клинический результат FAIRPARK-II (Devos и коллеги, 2022). В исследовании участвовали 372 человека с ранней болезнью Паркинсона, ранее не получавшие леводопу. За 36 недель общий балл MDS-UPDRS ухудшился на 15,6 пункта при деферипроне и на 6,3 при плацебо; разница составила 9,3 пункта (95% ДИ 6,3–12,2). Железо по МРТ снижалось сильнее при деферипроне, но это не сопровождалось клинической пользой. Среди серьёзных нежелательных явлений были агранулоцитоз и нейтропения.
Этот результат показывает предел суррогатного маркера: уменьшение железа в области мозга не равно улучшению функции. Он не опровергает все возможные роли ферроптоза, но противоречит представлению, что удаление железа автоматически лечит болезнь Паркинсона. Интервенции должны оцениваться по клиническим исходам и безопасности, а не только по достижению биохимической мишени.
Ишемия-реперфузия, сердце и доксорубицин
При ишемии меняются энергетическое снабжение и редокс-баланс; возвращение кислорода при реперфузии может усиливать окисление липидов на фоне доступного железа. В экспериментальных моделях ингибирование ферроптоза уменьшало повреждение миокарда, почек и других тканей. Масштаб эффекта зависит от протокола: нельзя переносить отдельный процент снижения повреждения на все инфаркты, инсульты или трансплантаты.
В исследованиях доксорубициновой кардиотоксичности, включая Fang и коллег 2019 года, отмечена роль железа и липидного окисления. Регуляция HMOX1, распад гема и митохондриальные изменения могут участвовать в этой цепи. Доксорубицин действует также через другие механизмы; спасение клеток в конкретной модели не означает полной профилактики кардиомиопатии у пациента.
Холодовая ишемия и последующая реперфузия донорского органа создают условия для нарушения ATP-зависимого обмена и накопления повреждений. Исследование ловушек липидных радикалов в перфузионных средах имеет трансляционный интерес. Сохранение ткани экспериментальным средством, клиническая пригодность трансплантата и долгосрочная функция органа требуют раздельного подтверждения. Повреждённые липиды могут влиять на врождённый иммунитет, однако воспаление после трансплантации не следует объяснять только ферроптозом.
Почки и печень
В работах Linkermann и Friedmann Angeli 2014 года ферроптоз исследован как механизм повреждения почечных канальцев. Потеря Gpx4, ишемия и условия поступления железа создают различную уязвимость; липрокстатин-1 использован как исследовательский защитный инструмент. При рабдомиолизе миоглобин и гемовое железо входят в более сложную картину повреждения почек, вместе с сосудистыми и канальцевыми факторами.
При болезнях печени перегрузка железом, метаболические нарушения и окислительное повреждение могут сочетаться, но гемохроматоз, MASH и токсическое поражение не являются одной ферроптозной нозологией. При передозировке парацетамола NAPQI расходует GSH; важны также митохондриальный стресс и некротическое повреждение. Снижение GSH само по себе не позволяет назвать всё поражение GPX4-зависимым ферроптозом или заменить принятую неотложную терапию экспериментальными ловушками радикалов.
Опухолевые персистеры, EMT и среда метастазирования
Работы Viswanathan и Hangauer 2017 года выявили зависимость некоторых клеток с мезенхимальным состоянием и лекарственно-толерантных персистеров от защиты GPX4. Изменения ZEB1, липидного состава и активности ферментов подготовки PUFA могут создавать уязвимость к липидному окислению. Это позволяет исследовать способы воздействия на клетки, пережившие обычную терапию.
Уязвимость неодинакова у всех опухолей и не гарантирует селективность относительно нормальных тканей. Доставка ингибитора, его химическая стабильность, переносимость и наличие параллельной защиты определяют применимость. Потеря VHL и особенности липидного обмена при светлоклеточном раке почки также изучаются в этом контексте; сама мутация не заменяет измерение чувствительности.
Ubellacker и коллеги в 2020 году показали на моделях меланомы, что лимфатическая среда может защищать распространяющиеся клетки от ферроптоза. Состав липидов, включая олеат, GSH и доступность железа различается между лимфой и кровью; включение MUFA способно повышать последующую устойчивость клеток. Это пример влияния окружающей среды на метастазирование, а не универсальное правило для любого рака или основание менять питание с целью управления метастазами.
8. Вмешательства и измерения: не превращать исследование в протокол лечения
Ловушки липидных радикалов
Феростатин-1 и липрокстатин-1 — широко используемые исследовательские ингибиторы ферроптоза. Как липофильные ловушки радикалов (RTA), они замедляют распространение цепного окисления. Перехват LOO• образует менее способный продолжать цепь радикал антиоксиданта; реакция не равнозначна каталитическому восстановлению PL-OOH ферментом GPX4.
Кинетические константы, эффективные концентрации и период полувыведения зависят от среды, вида, пути введения и структуры соединения. Фармакологическое спасение клеток полезно для проверки механизма, но необходимо учитывать доступ к нужной мембране и побочные эффекты. Fer-1 и Lip-1 не представлены здесь как доступные стандартные препараты профилактики инфаркта, нейродегенерации или старения.
Хелаторы железа и реальные риски
Дефероксамин, деферазирокс и деферипрон имеют медицинское применение при определённых состояниях перегрузки железом. Они различаются способом введения, распределением и профилем безопасности; это не взаимозаменяемые средства для «снижения окислительного стресса». Деферазирокс требует внимания к функции почек и печени, деферипрон — к риску нейтропении и агранулоцитоза с предусмотренным для лечения гематологическим контролем. Дефероксамин также имеет собственные риски, включая осложнения при неправильном использовании и чрезмерном удалении железа.
Снижение физиологически необходимого железа способно вредить. Показание, дозирование и мониторинг определяются установленным заболеванием и конкретным препаратом. Отрицательный FAIRPARK-II особенно не позволяет рекомендовать деферипрон как профилактический антиферроптозный препарат при болезни Паркинсона. Частота неблагоприятных событий не должна переноситься из одной популяции в любую другую.
Селен, NAC, CoQ и другие добавки
Селен необходим для синтеза Sec-содержащих белков, а цистеин и глицин — для GSH. Эти факты не доказывают эффективность единого «антиферроптозного стека» из селена, NAC, убихинола и астаксантина у здоровых людей или пациентов. В предоставленном наборе источников нет клинической проверки такого сочетания с исходами нейродегенерации, сердечного повреждения или продолжительности жизни.
Коррекция установленного дефицита селена отличается от его дополнительного приёма при достаточном обеспечении. Избыток вызывает токсичность; концентрация в сыворотке зависит от формы, распределения и обстоятельств измерения. Значение 110–130 мкг/л нельзя объявлять универсальной целью GPX4-терапии. Органические и неорганические формы метаболизируются по-разному; лабораторная химия взаимодействия с аскорбатом не обосновывает обязательный интервал приёма для всех клинических ситуаций без соответствующих данных.
N-ацетилцистеин (NAC) может служить источником цистеина и используется по конкретным медицинским показаниям. Его действие зависит от доставки, обмена и исходного состояния; увеличение плазменного предшественника не гарантирует восстановления GSH в нужном компартменте. Эфиры GSH применяют в исследовательских моделях доставки, а SAMe связан с транссульфурацией; эти механизмы не подтверждают произвольные лечебные дозы или эквивалентность препаратов.
CoQ участвует в мембранном редокс-обмене, но пероральный убихинол не следует описывать как гарантированный донор электронов для FSP1 или DHODH: ферменты восстанавливают CoQ за счёт своих источников электронов, а доставка добавки к соответствующему пулу требует доказательств. Астаксантин, токоферолы и токотриенолы исследуют как липофильные антиоксиданты; положение молекулы в бислое и антирадикальный эффект не устанавливают клиническую профилактику ферроптоза. Для любого вмешательства важны показания, безопасность и взаимодействия с текущей терапией, особенно при раке.
Что показывают лабораторные методы
C11-BODIPY 581/591 используют для оценки окисления в клеточных экспериментах: меняется соотношение красной и зелёной флуоресценции. Зонд отражает окислительную среду и зависит от условий окраски, освещения и анализа. Его сигнал нельзя считать самостоятельным доказательством гибели через ферроптоз.
F₂-изопростаны, MDA и аддукты 4-HNE помогают оценивать липидное окисление, но не уникальны для этого механизма. Масс-спектрометрический анализ конкретных окисленных фосфолипидов даёт более детальную информацию о субстратах. Даже точное измерение продукта не заменяет функционального и причинного подтверждения.
Селен сыворотки, активность глутатионпероксидаз эритроцитов и GSH/GSSG цельной крови оценивают разные звенья состояния организма; эритроцитарная активность GPX не является прямым анализом мембранной GPX4 мозга. Ферритин, насыщение трансферрина и МРТ T₂*/R₂* применяются в оценке обмена/накопления железа по соответствующим показаниям. Ни их комбинация, ни фиксированное насыщение трансферрина не образуют валидированный универсальный диагностический профиль «ферроптозной болезни».
9. Как читать эксперименты и трансляционные заявления
Сравнение молекулярных осей полезно, если не смешивать инструмент исследования с разрешённым лечением:
| Ось/процесс | Что меняет вмешательство | Типичный исследовательский инструмент | Что ещё нужно проверить |
|---|---|---|---|
| SLC7A11/GSH | Снабжение цистеином и восстановительными ресурсами | Эрастин, IKE; генетические изменения SLC7A11 | Состав среды, транссульфурацию, доступность цистеина и фактический GSH |
| GPX4 | Восстановление липидных гидропероксидов | RSL3, ML162, ML210; изменение Gpx4 | Мишень, липидное повреждение, спасение клеток и токсичность для нормальной ткани |
| ACSL4/LPCAT3 | Подготовку PUFA-содержащих фосфолипидов | Генетические вмешательства; фармакологические инструменты с ограниченной селективностью | Реальный липидом и альтернативные пути включения жирных кислот |
| ALOX15/PEBP1 | Ферментативное образование окисленных липидов в подходящей модели | Изменение компонентов комплекса, ингибиторы LOX | Прямое действие на фермент отдельно от радикального улавливания |
| NCOA4/ферритин | Мобилизацию запаса железа | Изменение NCOA4 и анализ лизосомного потока | Деградацию ферритина, локальный LIP и неспецифические эффекты аутофагии |
| FSP1/CoQ | Регенерацию мембранной ловушки радикалов | Изменение FSP1, iFSP1 и родственные исследовательские соединения | Локализацию, состояние CoQ и зависимость от GPX4 |
| DHODH | Пиримидиновый синтез и локальное восстановление CoQ | Бреквинар и другие ингибиторы DHODH в исследовательском контексте | Отдельный вклад недостатка пиримидинов и митохондриального липидного окисления |
| GCH1/BH₄ | Биоптериновый пул и липидную устойчивость | Генетические изменения, исследовательские ингибиторы | Регенерацию BH₄, липидом и функции биоптерина вне ферроптоза |
Практическая последовательность для оценки работы начинается с вопроса, где получен результат: в бесклеточной системе, культивируемых клетках, животном или у пациента. Затем нужно проверить, измерена ли фактическая гибель и подтверждена ли её связь с липидным окислением, железом и соответствующим защитным путём. После этого оценивают селективность вмешательства, достижимую экспозицию и последствия для нормальных тканей. Для клинического заявления последним необходимым звеном остаются значимые для пациента исходы и безопасность.
Исходная идея разделить цитопротекцию и противоопухолевую индукцию ферроптоза сохраняет исследовательскую ценность. Но схема «биомаркер повышен → назначить хелатор, селен и ловушку радикалов» не является подтверждённым клиническим алгоритмом. Диагностика и лечение должны соответствовать конкретному заболеванию; экспериментальная стратегия может стать терапией только после соответствующей проверки.
10. Что объединяет эту систему
GPX4 защищает мембраны не в одиночку. Для её работы нужны подходящий синтез селенопротеина, доставка GSH, регенерация за счёт NADPH и доступ к липидному субстрату. ACSL4/LPCAT3 и другие процессы определяют, какие цепи окажутся в мембране; железо и пути окисления определяют образование повреждений; FSP1, DHODH и GCH1/BH₄ меняют способность клетки ограничить радикальную цепь.
Поэтому один и тот же ингибитор имеет разный эффект в разных клетках и средах. Ферроптоз позволяет объяснить определённые модели тканевого повреждения и выявить уязвимость отдельных опухолевых состояний. Перевод этих механизмов в медицину требует не общего обещания «антиоксидантной защиты», а ясной мишени, локального воздействия, проверенного клинического результата и приемлемого риска.
Как подготовлен материал
Материал представляет редакционную переработку предоставленного текста и его библиографии, а не систематический обзор. Исходный локальный пакет не содержал сохранённого тела статьи или принятых иллюстраций. Механистические данные, животные модели и клинические результаты разграничены; неподтверждённые универсальные численные пороги и схема самостоятельного лечения не перенесены как установленные факты.
8 октября 2026 года выполнена выборочная проверка трёх конкретных противоречий: результата замены Sec на Cys в работе Ingold, участия SLC25A39 в митохондриальном импорте GSH и клинического исхода FAIRPARK-II. Для последнего исправлен DOI; добавлена необходимая первичная работа об SLC25A39. Полный повторный поиск литературы, аудит всех ссылок и формальная оценка GRADE не проводились. Ссылки в общем списке отражают предоставленную библиографическую основу и эту точечную проверку; их наличие не означает проверку каждого заявления по полному тексту каждого исследования.
При завершении материала 8 октября 2026 года отдельно восстановлено сравнение с купроптозом и адресно прочитана первичная работа Tsvetkov и коллег 2022 года в авторском репозитории Broad Institute.
Частые вопросы
Что делает GPX4?
Восстанавливает гидропероксиды сложных липидов, используя GSH, и ограничивает накопление повреждений мембран.
Можно ли диагностировать ферроптоз по MDA или ферритину?
Нет. Эти показатели неспецифичны; в исследовании нужны согласованные функциональные, липидные и причинные данные.
Заменяют ли добавки селена и NAC защиту GPX4?
Не автоматически. Потребность в субстратах не доказывает пользу универсального сочетания добавок; коррекция дефицита и лечение имеют отдельные показания и риски.
Помог деферипрон при ранней болезни Паркинсона?
В FAIRPARK-II симптомы ухудшались сильнее, чем при плацебо, несмотря на снижение железа по МРТ.
Почему GPX4 изучают при раке?
Некоторые опухолевые состояния чувствительны к потере её защиты. Применимость зависит от селективности, доставки, параллельных путей и безопасности нормальных тканей.
Источники
- Ferroptosis: an iron-dependent form of nonapoptotic cell death
- Regulation of ferroptotic cancer cell death by GPX4
- Ferroptosis: A Regulated Cell Death Nexus Linking Metabolism, Redox Biology, and Disease
- Ferroptosis turns 10: Emerging mechanisms, physiological functions, and therapeutic applications
- The selenoenzyme phospholipid hydroperoxide glutathione peroxidase
- Selenium Utilization by GPX4 Is Required to Prevent Hydroperoxide-Induced Ferroptosis
- The CoQ oxidoreductase FSP1 acts parallel to GPX4 to inhibit ferroptosis
- FSP1 is a glutathione-independent ferroptosis suppressor
- DHODH-mediated ferroptosis defence is a targetable vulnerability in cancer
- ACSL4 dictates ferroptosis sensitivity by shaping cellular lipid composition
- Oxidized arachidonic and adrenic PEs navigate cells to ferroptosis
- PEBP1 Wardens Ferroptosis by Enabling Lipoxygenase Generation of Lipid Death Signals
- Quantitative proteomics identifies NCOA4 as the cargo receptor mediating ferritinophagy
- The chemical basis of ferroptosis
- Ferroptosis: mechanisms, biology and role in disease
- Dependency of a therapy-resistant state of cancer cells on a lipid peroxidase pathway
- Drug-tolerant persister cancer cells are vulnerable to GPX4 inhibition
- Ferroptosis as a target for protection against cardiomyopathy
- Synchronized renal tubular cell death involves ferroptosis
- Inactivation of the ferroptosis regulator Gpx4 triggers acute renal failure in mice
- GTP Cyclohydrolase 1/Tetrahydrobiopterin Counteracts Ferroptosis through Lipid Remodeling
- Metabolic screening identifies GCH1-tetrahydrobiopterin as a regulator of ferroptosis
- Role of Mitochondria in Ferroptosis
- How selenium has altered our understanding of the genetic code
- From selenium to selenoproteins: synthesis, identity, and their role in human health
- Role of GPX4 in ferroptosis and its pharmacological susceptibility
- The Chemical Biology of Ferroptosis in the Central Nervous System
- Lipid peroxidation in cell death
- Resolving the Role of Lipoxygenases in the Initiation and Execution of Ferroptosis
- On the Mechanism of Cytoprotection by Ferrostatin-1 and Liproxstatin-1 and the Role of Lipid Peroxidation in Ferroptotic Cell Death
- Lipid peroxidation and ferroptosis: The role of GSH and GPx4
- Cytochrome P450 oxidoreductase contributes to phospholipid peroxidation in ferroptosis
- Ferroptosis as a p53-mediated activity during tumour suppression
- Lymph protects metastasizing melanoma cells from ferroptosis
- Trial of Deferiprone in Parkinson's Disease
- SLC25A39 is necessary for mitochondrial glutathione import in mammalian cells
- Copper induces cell death by targeting lipoylated TCA cycle proteins