Короткоцепочечные жирные кислоты: бутират, FFAR2/3 и HDAC
Как микробиота образует ацетат, пропионат и бутират, как колоноциты их поглощают и окисляют и чем рецепторные сигналы отличаются от ингибирования HDAC. Крипты, Treg, барьер, кишечные гормоны и клинические исследования: механизмы, исправленные расчёты и ограничения переноса результатов на человека.
Ацетат, пропионат и бутират связывают микробную ферментацию с энергетикой кишечного эпителия, рецепторными сигналами и регуляцией хроматина. Один и тот же метаболит может питать зрелый колоноцит и тормозить деление клетки, в которой он накапливается. Для понимания этих эффектов нужно различать просвет кишки, эпителий, иммунные клетки, портальную кровь и периферические ткани: их концентрации и метаболические возможности неодинаковы.
Ниже разобраны образование кислот, перенос через мембраны, митохондриальное окисление, FFAR2, FFAR3 и HCAR2, эпигенетика и клинические исследования. Механистические результаты клеточных и животных моделей отделены от испытаний у людей. Это научный разбор выбранных источников, а не систематический обзор или лечебный протокол.
1. Образование, химия и микробные сообщества
1.1. Ацетат C2, пропионат C3 и бутират C4
Короткоцепочечными жирными кислотами, КЦЖК или SCFA, обычно называют монокарбоновые кислоты с короткой углеродной цепью; границы определения в литературе различаются. Основные продукты углеводной ферментации в толстой кишке — ацетат, пропионат и нормальный, неразветвлённый бутират. В таблице приведены нейтральные кислоты; при физиологическом pH значительная их часть присутствует в виде анионов.
Кислота и анион
Формула кислоты
Молярная масса, г/моль
Приблизительное pKa
Уксусная кислота / ацетат
CH₃COOH
60,05
4,76
Пропионовая кислота / пропионат
CH₃CH₂COOH
74,08
4,87
Масляная кислота / n-бутират
CH₃CH₂CH₂COOH
88,11
4,82
Долю аниона определяет кислотно-основное равновесие. Для одноосновной кислоты HA и её аниона A⁻ уравнение Хендерсона—Хассельбаха даёт:
pHfA−=pKa+log10[HA][A−],=1+10pKa−pH1.
Здесь квадратные скобки обозначают концентрации, а f — безразмерную долю. При pH 5,5 эти pKa дают около 81–85% аниона и 15–19% нейтральной кислоты. Для бутирата получается примерно 82,7% аниона при pH 5,5 и 99,3% при pH 7,0. Поэтому утверждение, что при любом кишечном pH ионизированы 98–99% молекул, неверно. Это приближённый расчёт для раствора; ионная сила и пристеночная среда могут менять эффективное равновесие.
Разветвлённые кислоты — изобутират, изовалерат и 2-метилбутират — связаны прежде всего с ферментацией валина, лейцина и изолейцина. Они присутствуют в кишечном содержимом и не имеют универсальной «субмикромолярной» концентрации. Белковая ферментация одновременно образует другие соединения, поэтому наличие таких кислот нельзя само по себе считать мерой пользы или вреда.
1.2. Пути ферментации: ацетат, три пути пропионата и бутирил-КоА
Микробиота получает углеводы, избежавшие переваривания в тонкой кишке: резистентный крахмал, инулин, арабиноксиланы, пектины и другие полисахариды. Некоторые бактерии используют O-гликаны муцина. Это разные субстраты с разной доступностью; ферментация слизи не равнозначна поступлению пищевых волокон.
При синтезе ацетата пируват превращается в ацетил-КоА, в том числе с участием пируват:ферредоксин-оксидоредуктазы. Фосфотрансацетилаза образует ацетилфосфат, а ацетаткиназа переносит фосфат на АДФ, обеспечивая субстратное фосфорилирование. Ацетогенные бактерии могут использовать восстановительный путь Вуда—Льюнгдаля: углерод из CO₂ и восстановительные эквиваленты из H₂ включаются в ацетат. Пример кишечного ацетогена — Blautia hydrogenotrophica.
У пропионата существуют три основных пути. В сукцинатном пути промежуточные соединения включают оксалоацетат, малат, фумарат, сукцинат, сукцинил-КоА и метилмалонил-КоА; декарбоксилирование приводит к пропионил-КоА. Этот путь широко распространён у Bacteroidota и некоторых Negativicutes. Акрилатный путь перерабатывает лактат через лактойл-КоА и акрилоил-КоА; он обнаружен у ограниченного набора видов, включая Coprococcus catus. Veillonella нельзя автоматически относить к акрилатному пути: известные представители используют сукцинатный механизм. Пропандиольный путь начинается с дезоксисахаров, фукозы и рамнозы, и проходит через 1,2-пропандиол; он встречается, например, у Roseburia inulinivorans и родственников Blautia obeum. Геномная и изотопная работа Reichardt и соавт. (2014) показала, что путь зависит от вида и субстрата, а отдельные виды могут менять конечный продукт.
Для синтеза бутирата две молекулы ацетил-КоА конденсируются в ацетоацетил-КоА. Затем следуют 3-гидроксибутирил-КоА, кротонил-КоА и бутирил-КоА. Бутирил-КоА:ацетат-КоА-трансфераза переносит КоА на ацетат, высвобождая бутират и образуя ацетил-КоА. Другой вариант использует фосфотрансбутирилазу и бутираткиназу через бутирилфосфат с образованием АТФ. Трансферазный путь широко распространён среди кишечных бутиратпродуцентов, но процент его носителей зависит от исследованного сообщества и метода, а не является постоянной характеристикой всей микробиоты.
1.3. Синтрофия, pH и ориентировочное соотношение 60:20:20
Ацетат производит множество таксонов, включая бифидобактерии и бактероиды. Пропионат часто связан с Bacteroides, Prevotella и другими носителями соответствующих путей. К известным бутиратпродуцентам относятся Faecalibacterium, Roseburia, Eubacterium rectale и Anaerobutyricum hallii. Их функции определяются штаммом и питательной средой; численность одного рода не заменяет измерение потока метаболитов.
Перекрёстное питание связывает эти группы. Первичные деграданты крахмала высвобождают олигосахариды, а другие бактерии потребляют ацетат или лактат и образуют бутират. Поэтому бифидобактерия может поддерживать бутирогенез, сама не являясь прямым продуцентом бутирата. Потребление ацетата трансферазой особенно наглядно показывает эту взаимозависимость.
Соотношение ацетат:пропионат:бутират около 60:20:20 удобно как учебный ориентир для кишечного содержимого. Оно меняется с рационом, транзитом, участком кишки и микробным составом. В портальной и периферической крови профиль другой вследствие избирательного потребления эпителием и печенью. В исследовании Cummings и соавт. (1987) посмертно измеренная суммарная концентрация составляла 131 ± 9 ммоль/кг содержимого слепой кишки и 80 ± 11 ммоль/кг нисходящей ободочной кишки; pH менялся примерно от 5,6 до 6,6. Эти единицы массы содержимого нельзя незаметно подменять ммоль/л или выдавать результаты небольшой посмертной выборки за индивидуальную норму.
Нормировка этого приближённого профиля по порядку ацетат:пропионат:бутират даёт:
C2:C3:C4≈60:20:20=3:1:1.
Умеренно кислый pH может поддерживать некоторые бутиратпродуцирующие сообщества, тогда как более сильное закисление нарушает использование лактата. Работа Duncan и соавт. (2009) показывает экологическую зависимость, а не универсальное прекращение синтеза при pH ниже 5,5. Каловый уровень отражает одновременно продукцию, всасывание, воду и транзит: низкий остаток в кале не доказывает низкую продукцию, а высокий — достаточное снабжение колоноцита.
2. Мембранный транспорт и энергетика эпителия
2.1. MCT1, SMCT1, нейтральная диффузия и анионообмен
Нейтральная кислота может проходить через липидную мембрану. Аниону нужны другие пути, поэтому pH влияет и на химическую форму, и на поступление в клетку. Пристеночный микроклимат, ориентация переносчика и электролитные градиенты важны не меньше, чем общая концентрация в просвете.
MCT1, кодируемый SLC16A1, переносит монокарбоксилат вместе с H⁺ и в таком режиме является электронейтральным. Он также переносит лактат; направление потока определяется градиентами. SMCT1, продукт SLC5A8, использует натриевый градиент и обеспечивает высокоаффинный электрогенный транспорт; для него обычно описывают сопряжение двух Na⁺ с одним анионом. Базолатеральная Na⁺/K⁺-АТФаза поддерживает движущую силу. Значения Km и распределение MCT1 по апикальной и базолатеральной мембранам зависят от вида и экспериментальной системы, поэтому один диапазон нельзя приписывать всем колоноцитам.
В эпителии описан и обмен КЦЖК на бикарбонат. DRA, SLC26A3, прежде всего является обменником Cl⁻/HCO₃⁻ и важен для абсорбции электролитов и кислотно-основной среды. Его нельзя без отдельного экспериментального подтверждения представлять как единственный установленный переносчик всего бикарбонат-зависимого потока бутирата. Обзор транспортных механизмов Ganapathy и соавт. (2013) полезен для разграничения рецепторов и переносчиков: рецептор воспринимает сигнал, но не переносит топливный субстрат внутрь клетки.
Пассивный и переносчик-зависимый транспорт работают совместно. Универсальная доля пассивной диффузии 10–15% не установлена для всех участков и условий. Эпигенетическое выключение SLC5A8 описано в опухолевых моделях, однако из этого не следует, что любой опухолевый клон полностью лишён захвата бутирата.
2.2. Активация бутирата, один цикл β-окисления и выход АТФ
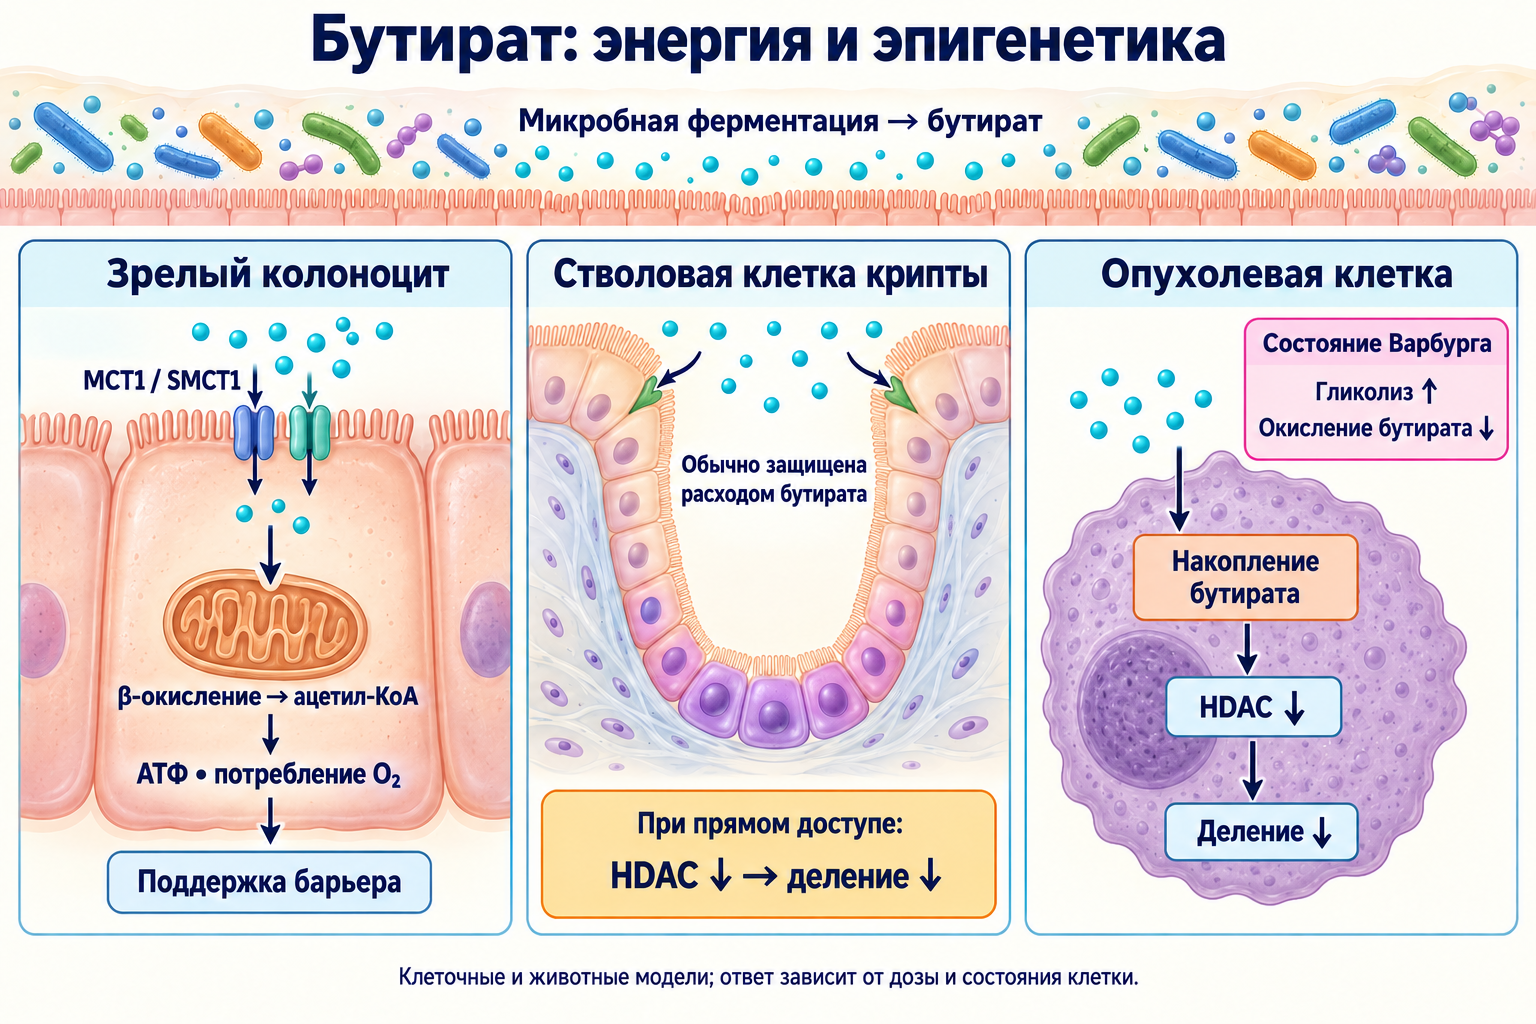
Зрелые поверхностные колоноциты активно окисляют бутират. Классические эксперименты Roediger (1980), а затем работы на безмикробных мышах Donohoe и соавт. (2011) связали микробный бутират с дыханием эпителия, запасами АТФ и аутофагией. Часто цитируемые 70–80% относятся к определённым экспериментальным оценкам энергетического вклада; они не являются постоянной долей АТФ во всех клетках крипты, при любом питании и воспалении.
Перед окислением свободная кислота активируется до бутирил-КоА ацил-КоА-синтетазами с расходом АТФ до АМФ и пирофосфата. Изоформы и компартменты различаются; ACSS2 прежде всего связывают с использованием ацетата, и его нельзя автоматически назначать основным ферментом активации C4. В человеческих эпителиальных моделях исследовались, в частности, ACSM3 и ACADS. Короткая свободная кислота не требует обычного CPT1-зависимого карнитинового челнока длинноцепочечных жирных кислот. В то же время КоА-эфир не диффундирует свободно через внутреннюю мембрану митохондрии. Это отличие помогает правильно сопоставить бутират с переносом длинноцепочечных кислот через CPT1.
Один цикл β-окисления C4 последовательно включает дегидрирование бутирил-КоА короткоцепочечной ацил-КоА-дегидрогеназой ACADS/SCAD, гидратацию кротонил-КоА ферментом ECHS1, NAD⁺-зависимое окисление 3-гидроксибутирил-КоА и тиолиз ацетоацетил-КоА. Получаются две молекулы ацетил-КоА. Электроны ACADS передаются через ETF и ETF:убихинон-оксидоредуктазу в пул убихинона, а не непосредственно через комплекс II. NADH отдаёт электроны комплексу I. Комплексы III и IV и дыхательная цепь создают протонный градиент, который использует F₁F₀-АТФ-синтаза; кислород восстанавливается до воды.
Активацию и один цикл можно записать как схематический биохимический баланс при фиксированном pH:
Первая строка показывает активацию; две следующие — один цикл β-окисления с расходом воды при гидратации. FAD здесь связан с ACADS, а его восстановленная форма — промежуточное состояние: электроны далее передаются через ETF и ETF:убихинон-оксидоредуктазу к убихинону. Запись не означает расхода свободного пула FAD или входа через комплекс II; обмен протонами с буфером при активации отдельно не расписан.
Учебный расчёт при коэффициентах P/O 2,5 для NADH и 1,5 для электронов флавинового пути выглядит так:
Каждый ацетил-КоА в цикле трикарбоновых кислот даёт расчётные 10 АТФ: три NADH, один флавиновый эквивалент и один GTP. Два дополнительных восстановительных эквивалента происходят из β-окисления, а 2 АТФ-эквивалента расходуются на активацию кислоты. Это стандартная стехиометрическая оценка, а не измеренная фиксированная производительность живого колоноцита. Значение 27 в исходном расчёте с этими допущениями не получается. Реальный выход меняют протонная утечка, сопряжение и отвлечение углерода в биосинтез.
Энергия нужна ионным насосам, обновлению белков, секреции слизи и поддержанию полярности эпителия. Но питание дифференцированных клеток не означает прямую стимуляцию всех делящихся клеток крипты.
2.3. Потребление кислорода, HIF и экология просвета
Дыхание колоноцитов снижает доступность кислорода на поверхности слизистой. Эпителий существует в градиенте физиологически низкого pO₂; конкретное значение зависит от участка и метода. Формулировку «менее 10 мм рт. ст.» можно встретить как характеристику гипоксической зоны, но это не диагностический порог для каждого человека.
При недостатке кислорода уменьшается пролилгидроксилирование HIF-α. Белок хуже распознаётся системой VHL для деградации, соединяется с HIF-β и регулирует гены барьерной и адаптивной программы. Kelly и соавт. (2015) показали связь метаболизма бутирата, потребления кислорода, стабилизации эпителиального HIF и барьерной функции в клеточных и животных моделях. Гипоксия здесь — часть нормальной локальной физиологии, а не рекомендация уменьшать системное снабжение организма кислородом.
В работах Rivera-Chávez и соавт. (2016) и Byndloss и соавт. (2017) уменьшение бутиратпродуцентов и нарушение эпителиального PPARγ-сигнала повышали доступность дыхательных акцепторов и поддерживали рост факультативных анаэробов, включая Enterobacteriaceae. Воспаление также предоставляет нитрат и другие акцепторы. Эффект представляет экологическое преимущество отдельных микроорганизмов, а не мгновенное уничтожение всех облигатных анаэробов при любом снижении бутирата.
2.4. Бутиратный парадокс и защищённая крипта
В моделях Donohoe и соавт. (2012) метаболическое состояние определяло действие бутирата. Окисляющая клетка использовала его углерод как топливо и источник ацетил-КоА для ацетилтрансфераз. В клетках с выраженным эффектом Варбурга, которые активно используют аэробный гликолиз, расходование бутирата было слабее: он накапливался и ингибировал HDAC. Это меняло транскрипцию, включая регуляторы клеточного цикла и апоптоза. Митохондрии опухоли при этом не обязательно полностью выключены; ответ зависит от линии, дозы, генетики и доступности других субстратов.
Стволовая клетка — отдельный случай. Kaiko и соавт. (2016) показали, что дифференцированные клетки у поверхности крипты метаболизируют бутират и защищают расположенные глубже стволовые и прогениторные клетки от его избытка. При прямом доступе, например после повреждения архитектуры, бутират через HDAC и FOXO3 может подавлять их пролиферацию. Поэтому универсальное утверждение «бутират стимулирует деление стволовых клеток» неверно; трофика зрелого эпителия, восстановление ткани и непосредственное действие на прогенитор не взаимозаменяемы.
2.5. Воспаление и нарушение использования бутирата
При активном воспалительном заболевании кишечника могут уменьшаться бутиратпродуцирующие таксоны, экспрессия переносчиков и способность эпителия использовать субстрат. Ferrer-Picón и соавт. (2020) исследовали биопсии и дифференцированные органоиды человека; TNFα изменял эпителиальный ответ и потребление бутирата. Это поддерживает гипотезу, что добавление субстрата не автоматически устраняет метаболическое ограничение.
Ранние измерения окисления и современные эпителиальные модели различаются дизайном и состоянием ткани. Единого падения на 50–70%, обязательного цитокинового гиперметилирования обоих переносчиков или универсального окисления конкретных цистеинов ACADS для всех пациентов не установлено. Митохондриальный трифункциональный белок прежде всего обслуживает длинноцепочечные субстраты; его нельзя подменять короткоцепочечными ферментами одного цикла C4. Энергетический дефицит способен ухудшать барьер, но воспалительные болезни многофакторны, и «сверхвысокая доза бутирата» не является доказанным способом восстановления митохондрий.
3. Мембранные рецепторы КЦЖК
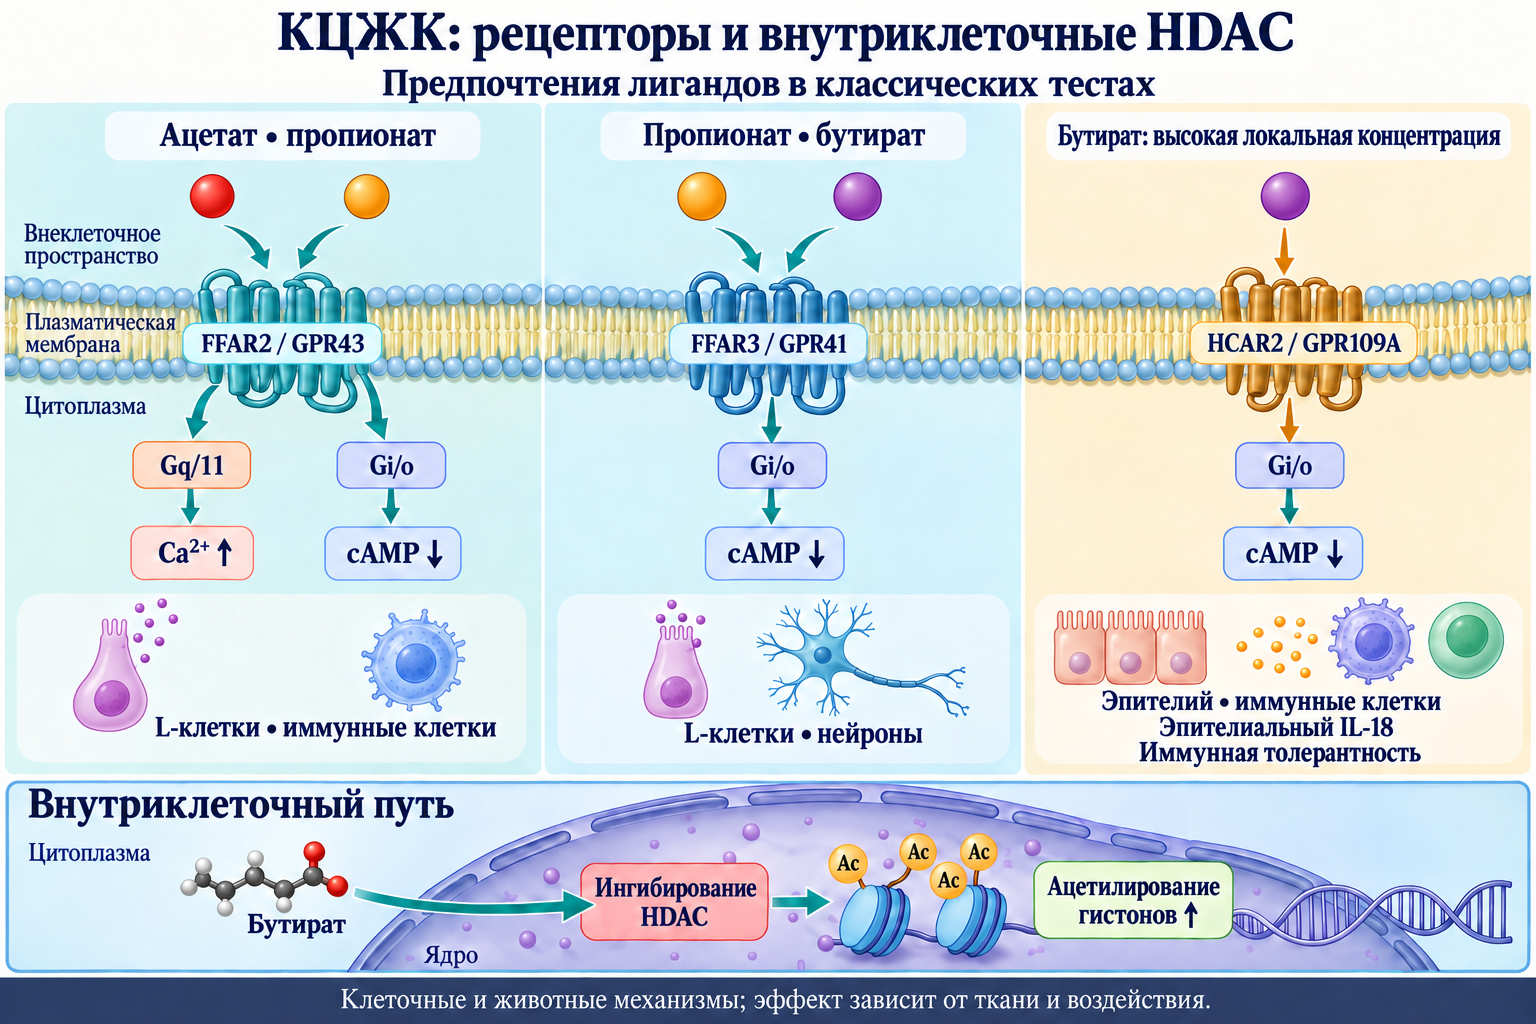
3.1. FFAR2/GPR43: Gq/11 и Gi/o
FFAR2 — семитрансмембранный рецептор свободных жирных кислот. В работах Brown и соавт. (2003) и Le Poul и соавт. (2003) ацетат и пропионат активировали его эффективнее некоторых более длинных кислот. Карбоксилат распознаётся заряженными участками рецепторного кармана; конкретная активность зависит от вида рецептора, системы и измеряемого ответа. EC₅₀ — концентрация половинного эффекта в заданном опыте, а не универсальная константа сродства или гарантированно достигаемый уровень в периферической крови.
Сопряжение с Gq/11 активирует PLCβ. Расщепление PIP₂ образует IP₃ и DAG: IP₃ мобилизует кальций из внутриклеточных депо, а DAG участвует в активации PKC. Эти сигналы могут поддерживать секрецию и клеточный ответ. Сопряжение с Gi/o снижает активность аденилатциклазы и цАМФ; субъединицы Gβγ могут дополнительно включать киназные каскады.
FFAR2 обнаруживается в энтероэндокринных и иммунных клетках, включая нейтрофилы. Хемотаксис, активация, разрешение воспаления и регуляция Treg зависят от клеточного контекста. Рецептор нельзя описывать как всегда подавляющий воспаление: реакция на инфекцию и ограничение хронического повреждения имеют разные задачи.
3.2. FFAR3/GPR41: нейроэндокринная и нервная регуляция
FFAR3 преимущественно сопряжён с Gi/o и в классических опытах лучше реагирует на пропионат и бутират, чем на ацетат. Снижение цАМФ — один из начальных сигналов; через Gβγ могут возникать другие ответы. Более низкое EC₅₀ в конкретной системе не означает, что FFAR3 всегда чувствительнее FFAR2 в любой ткани.
Рецептор исследовался в энтероэндокринных клетках, периферических и энтеральных нейронах. Эксперименты на животных связывают КЦЖК с симпатическим тонусом, расходом энергии и моторикой. Однако направление изменения транзита зависит от участка, концентрации и прямых и гормональных путей. «Толстокишечный тормоз» — физиологическая модель обратной связи, а не доказательство, что активация одного FFAR3 обязательно замедляет всю перистальтику у человека.
3.3. HCAR2/GPR109A, толерантность и эпителиальный IL-18
HCAR2, также известный как GPR109A и NIACR1, воспринимает никотиновую кислоту, β-гидроксибутират и, при более высоких локальных концентрациях, бутират. Это Gi/o-сопряжённый рецептор, исследованный в эпителии и клетках собственной пластинки. Высокий уровень бутирата в просвете не означает одинаковое воздействие на все системные HCAR2.
Singh и соавт. (2014) показали в мышиных моделях, что GPR109A поддерживает противовоспалительные свойства макрофагов и дендритных клеток, продукцию IL-10 и индукцию Treg, а в эпителии связан с IL-18. Ретиноевая кислота, образуемая ретинальдегиддегидрогеназами, и TGFβ участвуют в среде, поддерживающей толерантность. Потеря рецептора увеличивала восприимчивость к экспериментальному колиту и канцерогенезу, но это не равно доказанной профилактике рака добавкой у людей.
Направление инфламмасомного эффекта требует особой точности. Macia и соавт. (2015) связали питание волокнами и рецепторы GPR43/GPR109A с защитной эпителиальной активацией инфламмасомы; для GPR43 показали выход K⁺, гиперполяризацию и активацию NLRP3. Каспаза-1 обеспечивает созревание IL-18. Поэтому простая схема «HCAR2 блокирует NLRP3 и тем самым защищает эпителий» неверно передаёт эту работу. При других состояниях избыточное воспалительное или пироптотическое действие может быть вредным: важны клетка, время и сила активации.
3.4. GLP-1, PYY и энергетический баланс
L-клетки кишечника воспринимают метаболиты и выделяют GLP-1 и PYY. Tolhurst и соавт. (2012) связали стимулированную КЦЖК секрецию GLP-1 с FFAR2 в клеточных и мышиных экспериментах. Кальциевый сигнал и секреторная аппаратура соединяют рецептор с экзоцитозом. Одинаковая рецепторная экспрессия и строго эквимолярная секреция двух гормонов во всех условиях не следуют из этих данных.
GLP-1 усиливает глюкозозависимую секрецию инсулина, влияет на глюкагон, эвакуацию из желудка и аппетит. Результаты о неогенезе β-клеток в экспериментальных системах не доказывают их восстановление после обычного приёма волокон или бутирата у человека. PYY, особенно PYY₃₋₃₆, действует через Y2-рецепторы и нервно-гормональные пути насыщения; влияние на гипоталамические цепи не сводится к обязательному прямому проникновению каждой молекулы через гематоэнцефалический барьер. Подробности гормональной физиологии разбираются в материале о нутриентных сигналах GLP-1.
Исследование Chambers и соавт. (2015) использовало специальный инулин-пропионатный эфир, а не любую клетчатку. Острые опыты и 24-недельное исследование у 60 взрослых с избыточной массой тела дали сигналы изменения гормонов, потребления энергии и набора веса. Эти результаты нельзя автоматически переносить на любую форму бутирата или обещать одинаковое уменьшение висцерального жира каждому человеку.
3.5. Olfr78/OR51E2, сосудистый тонус и печень
Pluznick и соавт. (2013) показали, что мышиный обонятельный рецептор Olfr78 реагирует на ацетат и пропионат и участвует в регуляции ренина и давления. Человеческий ортолог — OR51E2. В эксперименте сопоставлялись рецепторные пути, способные ограничивать чрезмерное снижение давления при действии КЦЖК. Однако дозы, пороги и сосудистые ответы в мышиных опытах не создают готового двухпозиционного «реостата давления» для человека.
После всасывания разные кислоты распределяются неодинаково. Бутират активно расходуется эпителием, пропионат в значительной мере извлекается печенью, а ацетат чаще достигает периферического кровотока. Пропионат может давать углерод для глюконеогенеза через пропионил-КоА, метилмалонил-КоА и сукцинил-КоА; ацетат — для ацетил-КоА, окисления и липогенеза. Следовательно, метаболит может одновременно быть сигнальной молекулой и субстратом, а его эффект на липиды зависит от общего энергетического состояния. Универсальное прямое аллостерическое выключение FAS и ACC клиническим пропионатом не установлено.
4. HDAC, ацетилирование и другие метки хроматина
4.1. Что означает ингибирование HDAC
Цинк-зависимые HDAC удаляют ацетильные группы с лизина гистонов и ряда других белков. Ацетилирование уменьшает положительный заряд лизина и меняет взаимодействия хроматина, но доступность гена определяется также транскрипционными факторами, ремоделирующими комплексами и другими модификациями. Формула «ацетилирование всегда включает любой ген» слишком проста.
Бутират, и слабее пропионат, ингибирует определённые HDAC при достаточной внутриклеточной концентрации. Хорошо исследован вклад класса I, включая HDAC1, HDAC2 и HDAC3. Ацетат не является равнозначным прямым ингибитором. Нельзя представлять бутират как одинаково сильный пан-ингибитор всех HDAC I и IIa или давать один IC₅₀ для всех изоформ. Сиртуины используют NAD⁺ и не относятся к тому же механизму цинк-зависимого ингибирования; изменение их активности через метаболизм возможно без прямой блокады.
Карбоксилат и каталитический карман участвуют в распознавании короткоцепочечных ингибиторов. Но утверждение о доказанном универсальном кристаллическом комплексе, «идеальной» длине C4 и полном вытеснении воды во всех HDAC выходит за пределы подтверждённого здесь материала. Обзор Davie (2003) и исследования клеточной активности позволяют описывать эффект без вымышленной атомной точности. Изменение доступности ацетил-КоА для ацетилтрансфераз — второй механизм повышения ацетилирования, который отличается от блокады деацетилирования.
4.2. FOXP3 и периферические Treg
Furusawa и соавт. (2013), Arpaia и соавт. (2013) и Smith и соавт. (2013) показали дополняющие друг друга пути регуляции Treg в мышиных моделях. Бутират усиливал образование Foxp3⁺ клеток при подходящих сигналах TGFβ и IL-2; Arpaia связал внетимусную дифференцировку с энхансером CNS1. На уровне хроматина исследовалось ацетилирование, в том числе H3K27ac, у промотора и регуляторных областей Foxp3. Эффекты включали также ацетилирование и стабильность самого белка Foxp3.
Ацетат, пропионат и бутират не эквивалентны: FFAR2-зависимое увеличение колонического пула Treg и прямое HDAC-зависимое усиление дифференцировки различаются. Не все эффекты требуют HCAR2, и нельзя назначать SMCT1 обязательным входным путём для каждого T-лимфоцита. Treg способны вырабатывать IL-10 и TGFβ и ограничивать избыточную иммунную реакцию, но превращение не является гарантированно необратимым при любом дальнейшем воспалении. Человеческая пищевой антиген-специфическая толерантность требует отдельного клинического подтверждения.
4.3. Негистоновые белки: p53, NFκB и тубулин
Ацетилирование p53 может изменять стабильность белка, взаимодействие с MDM2 и программы клеточного цикла, репарации или апоптоза. HDAC-ингибиторы влияют на эти процессы в клеточных моделях, но эффект зависит от целостности p53 и других регуляторов; присутствие бутирата не гарантирует удаление любого мутировавшего клона.
У NFκB/RelA разные ацетилируемые остатки выполняют разные функции. Изменение связывания ДНК, удержания в ядре и взаимодействия с IκB нельзя объединить в правило «ацетилирование Lys310 выключает воспаление»: этот остаток связан также с транскрипционной активностью. Итоговый противовоспалительный эффект бутирата в конкретном опыте может сочетать метаболические, рецепторные и транскрипционные механизмы.
Ацетилирование α-тубулина Lys40 связано с организацией микротрубочек, а среди важных деацетилаз тубулина есть HDAC6. Из этого не следует, что слабый короткоцепочечный ингибитор действует на тубулин так же, как селективный ингибитор HDAC6. Везикулярный транспорт и полярность — содержательные направления исследования, но не универсально доказанный каскад лечебного действия бутирата.
4.4. Бутирилирование, кротонилирование и β-гидроксибутирилирование
Ацильные КоА участвуют в создании новых гистоновых меток. Бутирил-КоА может служить донором для бутирилирования лизина, Kbu, с участием ацилтрансфераз, включая p300/CBP. Кротонил-КоА даёт ненасыщенную кротонильную метку Kcr; её распознают некоторые YEATS-домены. Это химически разные модификации, а не автоматически более сильные версии ацетилирования.
Fellows и соавт. (2018) показали связь кишечной микробиоты с гистоновым кротонилированием и установили декротонилазную активность HDAC1, HDAC2 и HDAC3. Поэтому бутират способен повышать Kcr, тормозя удаление метки; это не обязательно означает, что весь её углерод непосредственно пришёл из принятой молекулы бутирата.
β-гидроксибутирилирование, Kbhb, исследовалось Xie и соавт. (2016) в связи с кетоновым телом β-гидроксибутиратом и метаболическими состояниями вроде голодания. Его нельзя просто выводить из L-3-гидроксибутирил-КоА промежуточного цикла β-окисления C4: кетоновый обмен, стереохимия, компартменты и образование ацильного донора требуют разграничения. Ни наличие метки, ни её корреляция с транскрипцией сами по себе не доказывают полезную клиническую «перепрошивку» организма.
4.5. Th17, Treg и B-клетки
КЦЖК изменяют дифференцировку T-клеток в зависимости от цитокиновой среды, концентрации и времени. Park и соавт. (2015) показали влияние HDAC и mTOR–S6K на образование как регуляторных, так и эффекторных клеток. Поэтому IL-17 нельзя считать всегда патологическим, а бутират — всегда превращающим Th17 в Treg посредством одного STAT3/SMAD3-переключателя.
В работе Kim и соавт. (2016) микробные метаболиты поддерживали метаболическую программу B-клеток и образование антител, включая IgA. Доступность ацетил-КоА, гликолиз, окислительное фосфорилирование и синтез липидов могут поддерживать плазматическую дифференцировку. При этом ацетат и другие кислоты имеют разные пути использования; нельзя записывать все три как одинаковые непосредственные субстраты ACSS2. Стимуляция антител может быть полезна для защиты, но сама по себе не означает подавления любого воспаления или аллергии.
5. Барьер, противомикробная защита, рак и кишечно-мозговая ось
5.1. Плотные контакты и слизь MUC2
Плотные контакты включают клаудины, окклюдин и адаптерные белки вроде ZO-1, соединённые с цитоскелетом. Бутират в экспериментальных моделях может менять их локализацию и сборку. Peng и соавт. (2009) связали улучшение барьерных показателей в монослоях Caco-2 с AMPK. HIF, метаболическое состояние и воспалительные киназы также участвуют в ответе; один обязательный MLCK/PKCθ-механизм не объясняет все системы.
Бокаловидные клетки создают полимерный муцин MUC2; его O-гликаны, секреция и организация слоёв слизи определяют контакты с микроорганизмами. КЦЖК могут влиять на экспрессию и выделение муцина, но эффект зависит от дозы и зрелости клетки. Это не гарантия «стерильности» внутреннего слоя или полного восстановления каждого дефекта гликозилирования.
TEER измеряет электрическое сопротивление эпителиального слоя. Поток маннитола, флуоресцентного декстрана и других зондов характеризует отдельные свойства проницаемости. Рост TEER в клеточном опыте не равнозначен излечению пациента, а процент изменения нельзя переносить между зондами и моделями. Ограничения маркеров подробнее рассмотрены в статье о кишечной проницаемости и плотных контактах.
5.2. LL-37, дефензины и секреторный IgA
Schauber и соавт. (2003) показали, что КЦЖК могут изменять экспрессию кателицидина LL-37 в клетках кишечного эпителия. Его предшественник hCAP18 и зрелый пептид участвуют в противомикробной защите. Изменение экспрессии гена CAMP не заменяет измерение зрелого активного пептида, а HDAC-эффект не исчерпывает все сигнальные пути. Для β-дефензинов реакция также зависит от ткани и воспалительных стимулов.
Секреторный IgA соединяет работу плазматических клеток и эпителия. Димерный IgA с J-цепью связывается с pIgR, проходит через эпителиальную клетку и высвобождается с секреторным компонентом. КЦЖК могут поддерживать B-клеточную программу и отдельные эпителиальные звенья, но весь трансцитоз нельзя приписать обязательной прямой активации FFAR2 ацетатом и пропионатом. Иммунное исключение микробов и токсинов зависит также от специфичности антител и состояния слизистого слоя.
5.3. Колоректальный канцерогенез и пределы клеточных результатов
В линиях колоректального рака бутират способен повышать экспрессию CDKN1A/p21 и тормозить переход G₁/S. Могут изменяться белки семейства BCL2, выход цитохрома c, апоптосома и каспазы. В отдельных моделях исследовалось подавление hTERT. Это набор потенциальных механизмов с различной зависимостью от p53 и опухолевого метаболизма, а не единая гарантированная программа уничтожения всех опухолей.
Защита в мышиной AOM/DSS-модели, изменение гистонов в культуре и наблюдательная связь потребления волокон с риском рака относятся к разным уровням доказательств. Волокна меняют не только бутират, а мутации, иммунная среда и дозы могут менять результат. Клиническое предотвращение или лечение колоректального рака изолированной добавкой бутирата этими исследованиями не установлено.
5.4. Гематоэнцефалический барьер, микроглия и BDNF
КЦЖК могут участвовать в кишечно-мозговой коммуникации через циркулирующие метаболиты, эндокринные, иммунные и нервные пути. Концентрация в просвете не равна концентрации в головном мозге; эпителий и печень особенно ограничивают системную экспозицию бутирата.
Braniste и соавт. (2014) связали отсутствие микробиоты у мышей с повышенной проницаемостью гематоэнцефалического барьера и изменением окклюдина и клаудина-5. Колонизация и отдельные метаболитные вмешательства изменяли показатели. Erny и соавт. (2015) показали влияние микробиоты и КЦЖК на созревание и функции микроглии. Эти модели не доказывают, что каждая молекула воздействует непосредственно через рецептор на самой микроглии или что любой препарат восстанавливает барьер мозга человека.
В экспериментальной нейробиологии HDAC-ингибирование может менять BDNF, пластичность и память. Часто применяются фармакологические дозы, отличающиеся от эндогенной экспозиции. Перенос на нейрогенез, когнитивные болезни или лечение нейровоспаления у человека остаётся отдельной исследовательской задачей.
6. Исследования у людей, формы и доставка
6.1. Диверсионный колит и воспалительные заболевания кишечника
В выключенном из пассажа сегменте кишки уменьшается поступление ферментируемых субстратов и КЦЖК. Harig и соавт. (1989) изучили четырёх пациентов: локальное введение смеси кислот дважды в сутки сопровождалось исчезновением симптомов и эндоскопических изменений за 4–6 недель. Гистология восстанавливалась медленнее и менее полно. Это важное подтверждение гипотезы трофического дефицита, но не рандомизированное доказательство «полного излечения за 2–3 недели у всех». Контролируемые исследования локальных смесей давали неоднородные результаты; хирургическое восстановление пассажа, когда возможно, решает иную причинную задачу.
При дистальном язвенном колите изучались ректальные растворы КЦЖК и бутирата, в том числе исследования Scheppach и соавт. (1992). Некоторые небольшие работы отмечали улучшение, другие не демонстрировали убедительного преимущества. Размер выборки, сопутствующая терапия, концентрация, объём, pH и удержание раствора важны для сопоставления. Эти данные не устанавливают универсальную ремиссию у 65–75% пациентов. При болезни Крона также изучались пероральные формы, но небольшая открытая серия не заменяет подтверждающее контролируемое исследование и стандартное лечение.
6.2. Синдром раздражённого кишечника
В рандомизированной работе Banasiewicz и соавт. (2013) участвовали 66 пациентов, продолжавших стандартную терапию. Добавление микрокапсулированного бутирата сравнивали с плацебо, оценка проводилась через 4 и 12 недель. Улучшалась частота отдельных симптомов, в том числе боли при дефекации и позднее срочных позывов и нарушений ритма стула. Снижение общей боли, метеоризма и выраженности нарушений не было статистически значимым для всех исходов. Вывод об одинаковом уменьшении боли на 50–65% передаёт результат неверно.
Висцеральная чувствительность, TRPV1 и барьерные механизмы исследуются отдельно; их нельзя считать измеренными в каждом клиническом испытании. Исследование препарата у людей не доказывает автоматически снижение «зонулина» или восстановление плотных контактов. Большие неконтролируемые серии могут описывать изменения симптомов, но не отделяют действие средства от плацебо, сопутствующего лечения и естественных колебаний СРК.
6.3. Метаболический синдром, масса тела и стеатоз
В клеточных и животных системах КЦЖК влияют на FFAR2 жировой ткани, цАМФ, липолиз и другие метаболические пути. У людей результат зависит от формы, места доставки и исходного состояния. Bouter и соавт. (2018) получили различный метаболический ответ на пероральный бутират у худых участников и участников с метаболическим синдромом; это противоречит универсальному обещанию повышения чувствительности к инсулину.
Инулин-пропионатный эфир Chambers и соавт. (2015) поддерживает возможность адресной доставки, но не устанавливает для любого продукта снижение HOMA-IR на 25–35%, регресс MASLD или предотвращение диабета. HOMA-IR, гиперинсулинемический эугликемический клэмп, жир печени и клинические исходы — разные измерения. Острый гормональный ответ нельзя подменять долговременным снижением заболеваемости.
6.4. Свободная кислота, соли, трибутирин и покрытия
Свободная масляная кислота имеет неприятный запах и быстро метаболизируется. Незащищённый пероральный продукт может всасываться до достижения толстой кишки, но приём не является физически «невозможным». Универсальные цифры «95% сразу всасывается» и «менее 0,1% достигает кишки» нельзя назначать всем составам без прямого исследования доставки.
Натриевая и кальциевая соли различаются составом и массой активного аниона. Липидные матрицы, энтеросолюбильные оболочки, бактериально расщепляемые полисахариды и комбинированные покрытия меняют профиль высвобождения. Eudragit L и S имеют разные свойства: нельзя приписывать каждому полимеру одинаковый порог pH 6,8–7,0. Кишечный pH и транзит особенно изменчивы при заболевании, поэтому лабораторная устойчивость капсулы не доказывает доставку всей дозы в толстую кишку.
Трибутирин — триэфир глицерина и масляной кислоты. Его гидролиз может высвободить три молекулы бутирата:
Трибутирин+3H2O⟶Глицерин+3Маслянаякислота.
Это пролекарственная форма, но сама по себе она не обеспечивает исключительно колонический гидролиз: липазы действуют и в верхних отделах кишечника. Сенсорные свойства, безопасность и фармакокинетика должны оцениваться для конкретного продукта.
6.5. Резистентный крахмал, инулин, пектины и псиллиум
Резистентный крахмал включает разные классы, в том числе природные гранулы RS2, ретроградированный RS3 и химически модифицированный RS4. Ruminococcus bromii может быть важным первичным деградантом, высвобождающим субстраты для других бактерий. Исходное сообщество определяет, увеличится ли бутират; один тип крахмала не гарантирует одинакового профиля у всех людей.
Инулин и FOS содержат преимущественно β-(2→1)-связанные фруктозные звенья. Степень полимеризации влияет на скорость и место ферментации, но утверждение, что любой длинноцепочечный инулин обязательно достигает конкретного дистального участка, требует данных. Рост бифидобактерий может менять перекрёстное питание и образование ацетата и других кислот. Быстро ферментируемые продукты у чувствительных людей могут усиливать газообразование.
Пектины — неоднородные полимеры с галактуроновой кислотой; метилирование и структура влияют на доступность бактериям. Профиль ацетата и пропионата варьирует, поэтому «75–80% ацетата» не является постоянной характеристикой всех пектинов. Псиллиум образует вязкий гель и ферментируется ограниченно и вариабельно. Его действие на воду и консистенцию стула не сводится к равномерному синтезу всех КЦЖК до прямой кишки; отсутствие газообразования также не гарантировано. Выбор субстрата должен учитывать переносимость и конкретную задачу, а не попытку любой ценой увеличить один каловый показатель.
6.6. Лучевое повреждение и иммунотерапия рака
Данные об экспериментальной защите слизистой нужно отличать от профилактики лучевого проктита у пациентов. В рандомизированном исследовании Maggio и соавт. (2014) у 166 пациентов ежедневные клизмы с бутиратом не уменьшали частоту, длительность и тяжесть острого лучевого проктита. Это не исключает всех иных форм и лечебных ситуаций, но опровергает универсальное обещание профилактического уменьшения тяжёлого колита на 40–60%. Исходная ссылка на PMID 28228514 относится к трибутирину и алкогольному повреждению у мышей, а не доказывает клиническую защиту от облучения.
Cannizzaro и соавт. (2025) описали одноцентровое проспективное исследование перорального микрокапсулированного бутирата у 122 последовательных пациентов с раком простаты. Доступный первичный реферат и подписи рисунков описывают одну когорту без параллельной контрольной группы. Благоприятная интерпретация кишечных симптомов авторами не устанавливает причинного снижения частоты проктита; эту форму нельзя приравнивать к клизмам исследования 2014 года.
Для иммунных контрольных точек направление эффекта тоже неоднозначно. Nomura и соавт. (2020) обнаружили ассоциации КЦЖК с ответом на ниволумаб или пембролизумаб в наблюдательной выборке. Coutzac и соавт. (2020) связали системные КЦЖК с ограничением противоопухолевого действия блокады CTLA-4 в экспериментальных и клинических наблюдениях. Метаболическое усиление CD8⁺ клеток, изменение презентации антигенов и толерантность могут действовать в разных направлениях. Эти данные не обосновывают самостоятельное добавление бутирата к PD-1/PD-L1 или CTLA-4-терапии.
6.7. Дозы исследований и корректное сравнение единиц
В ранних исследованиях использовали смеси и ректальные растворы с концентрациями отдельных кислот порядка десятков ммоль/л; в других работах — пероральные микрокапсулированные соли. Концентрация раствора, введённый объём и частота определяют количество вещества. Само число 80 ммоль/л ещё не является дозой:
n80mmol/L×0.060L=C×V,=4.8mmol.
Здесь n — количество вещества, C — концентрация, V — объём. Этот пример показывает арифметику для 60 мл раствора, а не рекомендацию делать клизму. Масса 4,8 ммоль безводного бутирата натрия составляет примерно 528 мг при молярной массе 110,09 г/моль; эквивалент свободной масляной кислоты — примерно 423 мг при 88,11 г/моль. «Элементарный бутират» неудачен как обозначение: на этикетке нужно знать, указана масса соли, кислоты или всей композиции.
Конкретная клиническая доза не выводится из мышиного рациона, концентрации в клеточной культуре или теоретического образования АТФ. Различия доставки и изученных исходов не позволяют объединить все исследования в универсальный курс 600–1200 мг на 6–12 недель. Терапевтические решения зависят от диагноза, зарегистрированной формы и клинических данных.
6.8. Недоношенность, некротизирующий энтероколит и пищевая аллергия
Созревание микробиоты, барьера и иммунной системы у младенца связано с метаболитами, но незрелая кишка отличается от взрослой. Дозозависимые эффекты КЦЖК, кислотность и чувствительность эпителия не позволяют автоматически переносить защиту взрослого колоноцита на недоношенного ребёнка. Клинического доказательства, что изолированный бутират снижает заболеваемость или смертность от некротизирующего энтероколита вдвое, рассмотренные работы не дают.
Berni Canani и соавт. (2016) изучали высокогидролизованную смесь с Lactobacillus rhamnosus GG у детей с аллергией к белкам коровьего молока и описали изменения бутиратпродуцирующих штаммов, связанные с развитием толерантности. Это вмешательство смесью и пробиотиком, а не испытание изолированного бутирата. Наблюдаемая микробная или эпигенетическая подпись не доказывает, что только бутират вызвал клинический эффект. FOXP3, Th2 и антиген-специфические Treg остаются важными механизмами для исследования, но состав и лечение пищевой аллергии требуют собственной доказательной базы.
6.9. Фармакокинетика и адресная доставка
Колоноциты и печень интенсивно используют КЦЖК, поэтому высокая локальная концентрация не создаёт такой же устойчивой системной концентрации. Скорость появления и исчезновения в крови зависит от пути введения, формы и состояния человека. Единственное «время полувыведения менее 5–10 минут» нельзя назначать любой пероральной микрокапсуле или трибутирину на основании данных иной формы.
Edelman и соавт. (2003) изучали трибутирин у 20 пациентов с распространёнными солидными опухолями и получили вариабельную системную экспозицию; объективных опухолевых ответов не было. Это фармакокинетическое исследование не подтверждает противоопухолевую эффективность или избирательную доставку к колоноциту. Защищённые соли, полимерные покрытия и микробно расщепляемые носители нужно оценивать по месту высвобождения, экспозиции, переносимости и исходам, а не только по слову «таргетированный».
Практический вывод из этих исследований — учитывать компартмент, метаболическое состояние клетки и конкретную форму. Эндогенная ферментация, экспериментальное введение высокой концентрации и приём продукта с бутиратом создают разные воздействия. Механистическая правдоподобность помогает задавать клинические вопросы, но ответ дают подходящие исследования у людей.
Частые вопросы
Почему бутират питает одни клетки, но тормозит деление других?
Зрелые колоноциты активно окисляют его. Защищённые клетки крипты и некоторые опухолевые клетки метаболизируют его иначе; при достаточном прямом воздействии возрастает влияние на HDAC и клеточный цикл. Доза, доступ и состояние клетки определяют результат.
FFAR2/3 и HDAC — один механизм?
Это разные пути. FFAR2/3 — мембранные рецепторы, меняющие кальциевые и cAMP-сигналы. HDAC удаляют ацетильные группы с белков; внутриклеточный бутират способен тормозить отдельные ферменты. Рецепторная активация не доказывает ингибирования HDAC.
Можно ли оценить выработку бутирата по его содержанию в кале?
Надёжно оценить весь поток нельзя. Кал отражает остаток после образования, поглощения, взаимного питания микробов и транзита. Низкий уровень может сопровождать активное поглощение, а высокий — нарушенное использование.
Любая клетчатка одинаково повышает бутират?
Нет. Резистентный крахмал, инулин, пектины и псиллиум отличаются структурой и ферментацией. Ответ зависит от микробиоты и дозы; часть эффекта клетчатки связана с вязкостью и водой. Возможны газ и вздутие.
Доказывают ли исследования эффективность бутирата при СРК или колите?
Отдельные небольшие исследования поддерживают некоторые симптомы или местные эффекты, но формы, сопутствующая терапия и результаты различаются. Они не дают универсального процента ремиссии и не устанавливают замену стандартного лечения.
Трибутирин, микрокапсула и клизма взаимозаменяемы?
Нет. Они отличаются местом и временем высвобождения, всасыванием и переносимостью. Из трибутирина могут образоваться три бутиратных эквивалента, но это не доказывает их высвобождения только в толстой кишке.
Есть ли универсальная доза и длительность курса?
Нет. Концентрация раствора не равна суточной пероральной дозе, а масса соли не равна массе свободной кислоты. Нужны данные о конкретной форме, болезни, исходах и переносимости; расчёт в статье не является схемой лечения.
Можно ли переносить механизмы на лечение рака, болезней мозга или младенцев?
Прямой перенос не обоснован. Значительная часть данных получена в клетках и животных, онкологические взаимодействия зависят от лечения, а физиология младенца отличается. Клиническую пользу и безопасность конкретного вмешательства требуется проверять отдельно.