Qisqa zanjirli yog‘ kislotalari: butirat, FFAR2/3 va HDAC
Mikrobiota atsetat, propionat va butiratni qanday hosil qiladi, kolonotsitlar ularni qanday so‘rib olib oksidlaydi va retseptor signallari HDAC ingibitsiyasidan qanday farq qiladi? Kriptalar, Treg, to‘siq, ichak gormonlari va insondagi tadqiqotlar: tuzatilgan hisoblar hamda klinik xulosalar chegaralari.
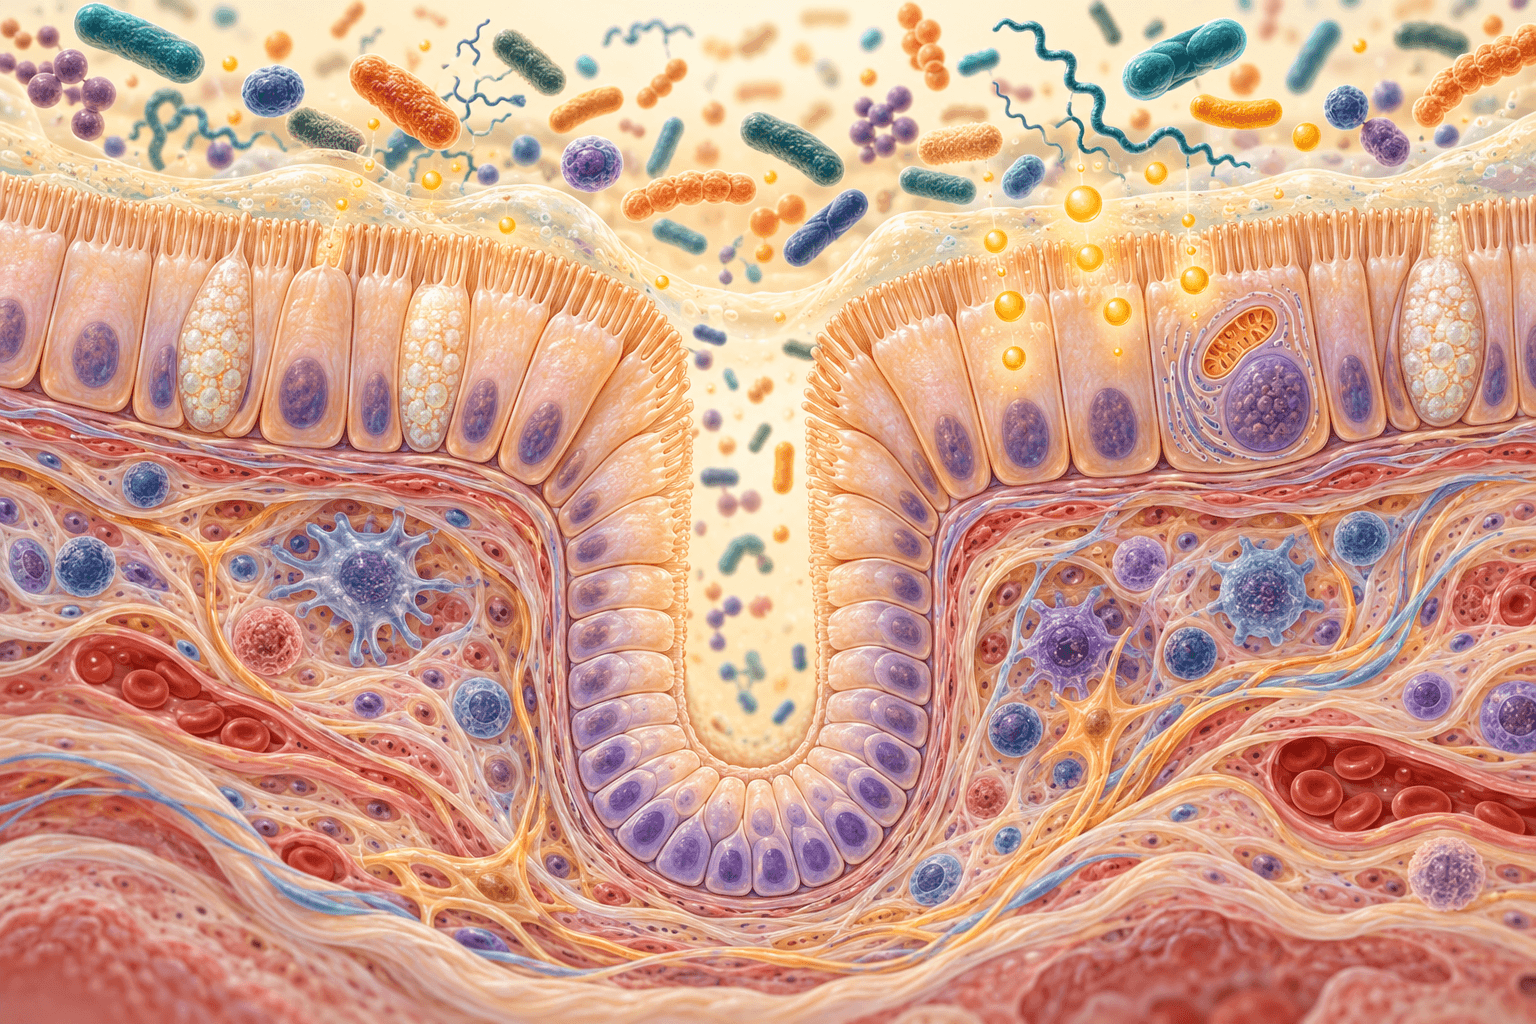
Asetat, propionat va butirat ichak mikroblarining metabolitlari, hujayralar uchun substratlar hamda retseptor va xromatin orqali ta’sir qiluvchi signallardir. Ularning ta’siri molekula nomigagina emas, ichak bo‘shlig‘i, epiteliy yoki qondagi joylashuviga, konsentratsiyaga va hujayraning metabolik holatiga bog‘liq. Shu sababli butiratning yetilgan kolonotsitni oziqlantirishi bilan ayrim hujayralarning bo‘linishini susaytirishi bir-biriga zid emas.
Bu material dastlabki manbadan rivojlantirilgan ilmiy hikoyaviy tahlildir: asosiy mexanizmlar va insondagi muhim tadqiqotlar tekshirilib, noto‘g‘ri bog‘langan manbalar va haddan tashqari qat’iy xulosalar tuzatildi. U tizimli sharh yoki klinik qo‘llanma emas. Hujayra va hayvon tajribalari sababiy mexanizmni yoritadi; odamdagi kuzatuv yoki kichik sinov esa har qanday qo‘shimchaning samaradorligini kafolatlamaydi.
1. Kimyo, mikrob yo‘llari va ichak ekologiyasi
1.1. Uglerod zanjiri, ionlanish va tarmoqlangan kislotalar
Qisqa zanjirli yog‘ kislotalari, QZYK, odatda olti ugleroddan qisqa monokarboksil kislotalarni anglatadi. Yo‘g‘on ichakda ko‘p o‘rganilgan uch vakil asetat, propionat va butiratdir. Kislota nomi bilan uning anioni nomi muhit pHiga qarab farqlanadi; butir kislota va butirat bir kislota–asos juftining shakllaridir.
| Kislota | Uglerodlar | Neytral shaklining qisqartirilgan formulasi | Taxminiy pKₐ |
|---|---|---|---|
| Sirka kislota / asetat | C2 | CH₃–COOH | 4,76 |
| Propion kislota / propionat | C3 | CH₃–CH₂–COOH | 4,87 |
| Butir kislota / butirat | C4 | CH₃–CH₂–CH₂–COOH | 4,82 |
Ionlangan ulushni Henderson–Hasselbalch tenglamasi bilan baholaymiz:
pH 5,5 da bu kislotalarning taxminan 81–85%i ionlangan; butirat uchun ulush 82,7% atrofida. Uni shu pHda 98–99% deb ko‘rsatish noto‘g‘ri. pH 7,0 da butirat taxminan 99,3% ionlangan bo‘ladi. Shuning uchun ionlanishning o‘zgarishi neytral shakl diffuziyasiga ta’sir qiladi, ammo butun epiteliy transportini birgina tenglama bilan hisoblab bo‘lmaydi. Mahalliy pH, transportyorlar va hujayradagi iste’mol ham qatnashadi.
Oqsil fermentatsiyasidan tarmoqlangan kislotalar ham hosil bo‘ladi: valindan izobutirat, leysindan izovalerat, izoleysindan 2-metilbutirat. Ular uglevodlardan olinadigan asosiy uchlikka teng emas. Fekal yoki ichak bo‘shlig‘idagi miqdorni barcha vaziyatda submikromolyar deb belgilash mumkin emas: ovqat, substrat, namuna joyi va tahlil usuli muhim. Oqsil fermentatsiyasi ammiak, fenollar va boshqa moddalarni ham beradi; bir kislota miqdori barcha jarayonni ifodalamaydi.
1.2. Asetat, propionat va butirat qanday hosil bo‘ladi?
Asetat ko‘p mikroblarda piruvatdan asetil-KoA, keyin asetilfosfat orqali hosil bo‘ladi; asetatkinaza bosqichi ATP hosil qilishi mumkin. Anaerob sharoitda piruvatning parchalanishi piruvat:ferredoksin oksidoreduktaza kabi yo‘llardan foydalanadi. Asetogenlar, masalan Blautia hydrogenotrophica, Wood–Ljungdahl yo‘li bilan H₂ va CO₂ni asetatga aylantirishi mumkin. Bu shunchaki bitta universal ferment zanjiri emas: bakterial guruh va elektron akseptorlari farqlanadi.
Propionatning uch asosiy yo‘li bor. Suksinat yo‘lida fumarat–suksinat va metilmalonil-KoA oraliqlari qatnashadi; bu yo‘l ko‘plab Bacteroides guruhlarida uchraydi. Akrilat yo‘li laktatni propionatga aylantiradi, masalan Coprococcus catusda. Propandiol yo‘li fukoza va ramnoza kabi deoksishakarlardan foydalanib, 1,2-propandiol oraliq mahsulotini beradi. Reichardt va hamkorlari (2014) yo‘llarning ichak mikroblari orasida tarqalishini ko‘rsatdi: har bir propionat ishlab chiqaruvchi barcha uch yo‘lga ega emas.
Butirat sintezida ikki asetil-KoA asetoasetil-KoAga kondensatsiyalanadi, keyin 3-gidroksibutiril-KoA, krotonil-KoA va butiril-KoA hosil bo‘ladi. Yakuniy bosqich ko‘p ichak anaeroblarida butiril-KoA:asetat KoA-transferaza orqali kechib, tashqi asetatdan foydalanadi. Boshqa mikroblarda fosfotransbutirilaza va butiratkinaza yo‘li mavjud. Qaytaruvchi ekvivalentlar, elektron bifurkatsiyasi va fermentlarning yo‘nalishi energiya saqlanishiga ta’sir qiladi. Bakterial butirat sintezini odam kolonotsitidagi butiratning oksidlanishi bilan aynan bir yo‘l deb qabul qilish mumkin emas.
1.3. Turlar, o‘zaro oziqlanish va o‘lchovlarning chegarasi
Faecalibacterium prausnitzii, Roseburia va Eubacterium rectale kabi guruhlar butirat ishlab chiqarishda muhim. Bifidobakteriyalar asetat va laktat hosil qilib, boshqa turlarga substrat yetkazishi mumkin. Bir mikrob murakkab uglevodni parchalab, ikkinchisi uning oraliq mahsulotidan butirat ishlab chiqaradigan o‘zaro oziqlanish bir tur sonidan ko‘ra murakkabroq tizimdir.
Cummings va hamkorlari (1987) odam yo‘g‘on ichagi va turli qon bo‘limlaridagi QZYKni o‘lchadi. Bo‘shliqdagi jami konsentratsiyalar odatda o‘nlab mmol miqyosida bo‘lib, namuna joyi va ifodalanish birligiga qarab mmol/kg tarkib yoki mmol/l ishlatiladi; ularni shunchaki bir xil deb ko‘chirish noto‘g‘ri. Asetat:propionat:butirat uchun 60:20:20 nisbati foydali taxmin, doimiy biologik qonun emas. Proksimal va distal ichakda fermentatsiya, pH, suv miqdori va so‘rilish farqlanadi.
Ushbu taxminiy profilni asetat:propionat:butirat tartibida normallashtirsak:
Duncan va hamkorlari (2009) pH mikrob turlarining nisbatini o‘zgartirishini ko‘rsatdi. Shu bilan birga QZYKning o‘zi pHni o‘zgartiradi, tranzit va substrat mavjudligi jarayonga ta’sir qiladi. Najasdagi konsentratsiya ishlab chiqarish minus so‘rilish, foydalanish va suyulish natijasidir. Past najas butirati har doim kam ishlab chiqarishni, yuqori qiymat esa yaxshi epiteliy foydalanishini bildirmaydi. Qon, bo‘shliq va najas ko‘rsatkichlari bir-birining bevosita o‘rnini bosmaydi.
2. Transport, oksidlanish va kolonotsitning metabolik holati
2.1. Epiteliyga kirish: MCT1, SMCT1 va neytral shakl
MCT1, SLC16A1, proton bilan bog‘langan monokarboksilat transportida qatnashadi. SMCT1, SLC5A8, natriy gradientidan foydalanadigan yuqori affinlikli transportyor; ko‘p tizimlarda ikki Na⁺ning bir monokarboksilat bilan bog‘lanishi tavsiflangan. Membranadagi joylashuv va ekspressiya hujayraning yetilishiga, segmentga hamda kasallikka bog‘liq. Butun ichakni bitta transportyor boshqaradi degan xulosa to‘g‘ri emas.
Ionlanmagan HA shakli lipid membrana orqali o‘tishi mumkin; uning ulushi pH tushganda ortadi. Ammo diffuziya va tashuvchi orqali oqimning aniq hissasi turli tizimlarda o‘zgaradi. DRA, SLC26A3, kabi anion almashinuv yo‘llarini ham har sharoitda bevosita asosiy butirat tashuvchisi deb belgilash mumkin emas. Epiteliy sirtidagi mikromuhit umumiy bo‘shliqdan farqlanishi, hujayradagi tez oksidlanish esa kirish gradientini saqlashi mumkin.
2.2. C4 oksidlanishi, elektron uzatilishi va ATP hisobi
Erkin butirat avval butiril-KoAga faollashtiriladi. ATP→AMP+pirofosfat hisobida ikki yuqori energiyali fosfat bog‘i ekvivalenti sarflanadi. Qisqa va o‘rta zanjirli kislotalar bilan ishlaydigan sintetazalarning substrat tanlovi va hujayra bo‘limi muhim. ACSS2ning asosiy roli asetatni asetil-KoAga aylantirish; uni barcha uch QZYK uchun yagona umumiy sintetaza deb ko‘rsatish noto‘g‘ri. ACSM3 kabi fermentlar qisqa substratlarni faollashtirishda muhokama qilinadi, lekin barcha hujayrada bir ferment nomini mutlaq qoida qilish kerak emas.
C4 odatda uzun zanjirli yog‘ kislotalar kabi CPT1–karnitin shattliga majburiy bog‘liq emas. Erkin qisqa kislota va zaryadlangan butiril-KoA turli kimyoviy shakllardir: erkin kislotaning membranadan o‘tishi butiril-KoA mitoxondriya ichki membranasidan erkin diffuziyalanadi degani emas. Faollashish joyi va substrat transportini ajratish kerak. Uzun zanjirli yo‘l CPT1 va yog‘ kislotalari oksidlanishi haqidagi materialda batafsil tushuntirilgan.
Bir β-oksidlanish siklida qisqa zanjirli asil-KoA degidrogenaza, ACADS, butiril-KoAni krotonil-KoAga aylantiradi. Elektronlar fermentdagi FADdan elektron tashuvchi flavoprotein, ETF, va ETF:ubixinon oksidoreduktaza orqali ubixinon hovuziga o‘tadi; bu kompleks II orqali kirish bilan aynan bir yo‘l emas. Enoil-KoA gidrataza, ECHS1, L-3-gidroksibutiril-KoA hosil qiladi, keyingi NAD⁺ga bog‘liq oksidlanish asetoasetil-KoA va NADH beradi. Tiolaza mahsulotni ikki asetil-KoAga ajratadi.
Aktivatsiya va bitta siklni o‘zgarmas pHdagi sxematik biokimyoviy balans bilan ko‘rsatish mumkin:
Birinchi qator aktivatsiya, keyingi ikki qator esa gidratatsiyada sarflanadigan suvni ham o‘z ichiga olgan bitta β-oksidlanish siklidir. Bu yerda FAD ACADSga bog‘langan, qaytarilgan shakli esa oraliq holat: elektronlar keyin ETF va ETF:ubixinon oksidoreduktaza orqali ubixinonga o‘tadi. Yozuv erkin FAD zaxirasi sarflanishini yoki kompleks II orqali kirishni anglatmaydi; aktivatsiyadagi bufer bilan proton almashinuvi alohida yozilmagan.
Ikki asetil-KoA sitrat siklida jami oltita NADH, ikkita FADga bog‘liq qaytaruvchi ekvivalent va ikkita GTP beradi. β-oksidlanishning o‘zidagi bitta NADH va bitta ETF orqali elektron jufti qo‘shiladi. NADH uchun P/O=2,5, FAD/ETF kirishi uchun P/O=1,5 deb olingan o‘quv hisobida:
Shu standart shartlarda 27 ATP deyilishi noto‘g‘ri. 22 nazariy hosil bo‘lib, hujayrada doim o‘lchanadigan qat’iy son emas: proton sizishi, transport, boshqa biosintetik sarflar va nafas olish holati uni o‘zgartiradi. Roediger (1980) va Donohoe hamkorlari (2011) butiratning kolonotsit energiyasidagi ahamiyatini ko‘rsatgan. Ba’zan keltiriladigan 70–80% hissani barcha odam, ichak segmenti va kasallik holatiga universal ulush sifatida tatbiq qilib bo‘lmaydi.
2.3. Kislorod iste’moli, HIF va PPARγ
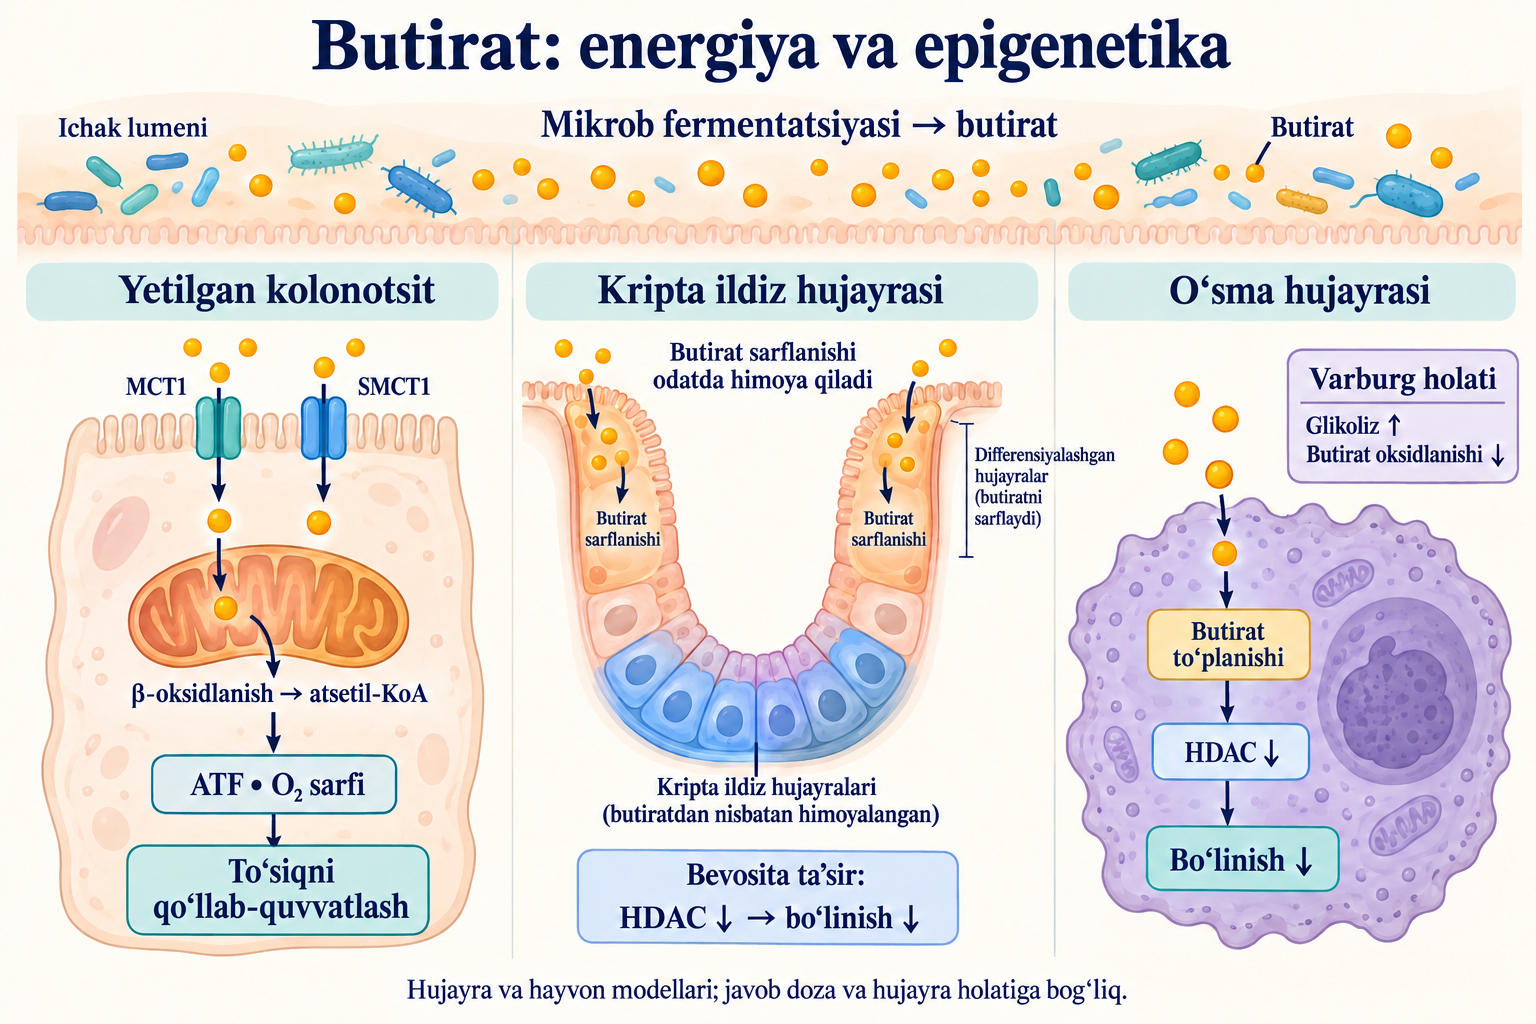
Yetilgan kolonotsitning butiratni oksidlashi kislorod iste’molini oshirib, bo‘shliq yaqinidagi kam kislorodli muhitga hissa qo‘shadi. HIFαning parchalanishi kislorodga bog‘liq gidroksilaza va VHL orqali tartiblanadi; kislorod kamayishi HIF faolligini saqlashi mumkin. Kelly va hamkorlari (2015) mikrob QZYK, epiteliy HIF va to‘siq faoliyati o‘rtasidagi aloqani tajribada ko‘rsatdi. Bu barcha vaziyatda bitta qat’iy kislorod foizi yoki butirat dozasini anglatmaydi.
Rivera-Chávez va hamkorlari (2016), Byndloss va hamkorlari (2017) oksidlovchi epiteliy metabolizmi, PPARγ va fakultativ anaeroblarning kengayishi orasidagi bog‘liqlikni yoritdi. Butirat ishlab chiqaruvchilarning kamayishi va yallig‘langan epiteliydagi metabolik siljish kislorod, nitrat kabi elektron akseptorlarini o‘zgartirib, Enterobacteriaceaega ustunlik berishi mumkin. PPARγ va HIF alohida, o‘zaro bog‘liq tartibga soluvchilar; biri ikkinchisining oddiy sinonimi emas. Butirat barcha patogenni bevosita zaharlab yo‘q qiladi degan xulosa ham kelib chiqmaydi.
2.4. Butirat paradoksi: yetilgan, ildiz va o‘sma hujayralari
Yetilgan kolonotsit butiratni tez oksidlab, ATP hosil qiladi. Ayrim o‘sma hujayralarida oldindan mavjud Warburg holati — kislorod bo‘lsa ham glikolizning yuqoriligi va butirat oksidlanishining kamayishi — kirgan butiratning hujayrada to‘planishiga imkon beradi. Donohoe va hamkorlari (2012) shu metabolik holat HDACga bog‘liq giston asetillanishi va proliferatsiya ta’sirini o‘zgartirishini ko‘rsatdi. Buni butiratning o‘zi glikolizni boshlab beradi degan ketma-ketlikka aylantirish mumkin emas. O‘sma mitoxondriyalari to‘liq ishlamaydi degan umumiy da’vo ham noto‘g‘ri: metabolik holatlar xilma-xil.
Kriptada ham muhim farq bor. Kaiko va hamkorlari (2016) yuqoridagi yetilgan kolonotsitlar butiratni iste’mol qilib, pastdagi ildiz va progenitor hujayralarni bevosita ta’sirdan himoyalashini ko‘rsatdi. Kripta to‘sig‘i buzilib, butirat shu hujayralarga yetganda HDAC/FOXO3 bilan bog‘liq yo‘llar orqali ularning bo‘linishi susayishi mumkin. Shuning uchun butirat barcha epiteliy hujayrasini har doim ko‘proq bo‘linishga undaydi deb aytish noto‘g‘ri. Joylashuv, dozasi va metabolik holati javobni belgilaydi.
2.5. Yallig‘lanishda butiratdan foydalanish nega o‘zgaradi?
Yallig‘langan ichakda epiteliy holati, transportyorlar, mitoxondriyalar va mikrob substratlari birga o‘zgaradi. Ferrer Picón va hamkorlari (2020) odam ichagi organoidlarida yallig‘lanish butiratga javobni o‘zgartirishini ko‘rsatdi. TNF kabi signallar tufayli sog‘lom epiteliydagi foydali ta’sir faol yallig‘lanishdagi hujayrada aynan takrorlanmasligi mumkin.
Barcha bemorda oksidlanish 50–70% tushadi yoki ACADSning aynan bir sisteini oksidlanishi yagona sabab degan da’volar bu dalillardan kelib chiqmaydi. Uzun zanjirli substratlar uchun muhim mitoxondrial uch funksiyali kompleksni C4 oksidlanishining har bosqichi uchun majburiy ferment deb berish ham noto‘g‘ri. Genetik nuqson, redoks holat, mikrobiota va yallig‘lanish ta’sirini ajratish zarur. Butirat yetishmovchiligi va undan foydalanishning buzilishi birga bo‘lishi mumkin; ko‘proq berish har muammoni avtomatik tuzatmaydi.
3. FFAR2, FFAR3, HCAR2 va retseptor signallari
3.1. FFAR2/GPR43: Gq/11 va Gi/o yo‘llari
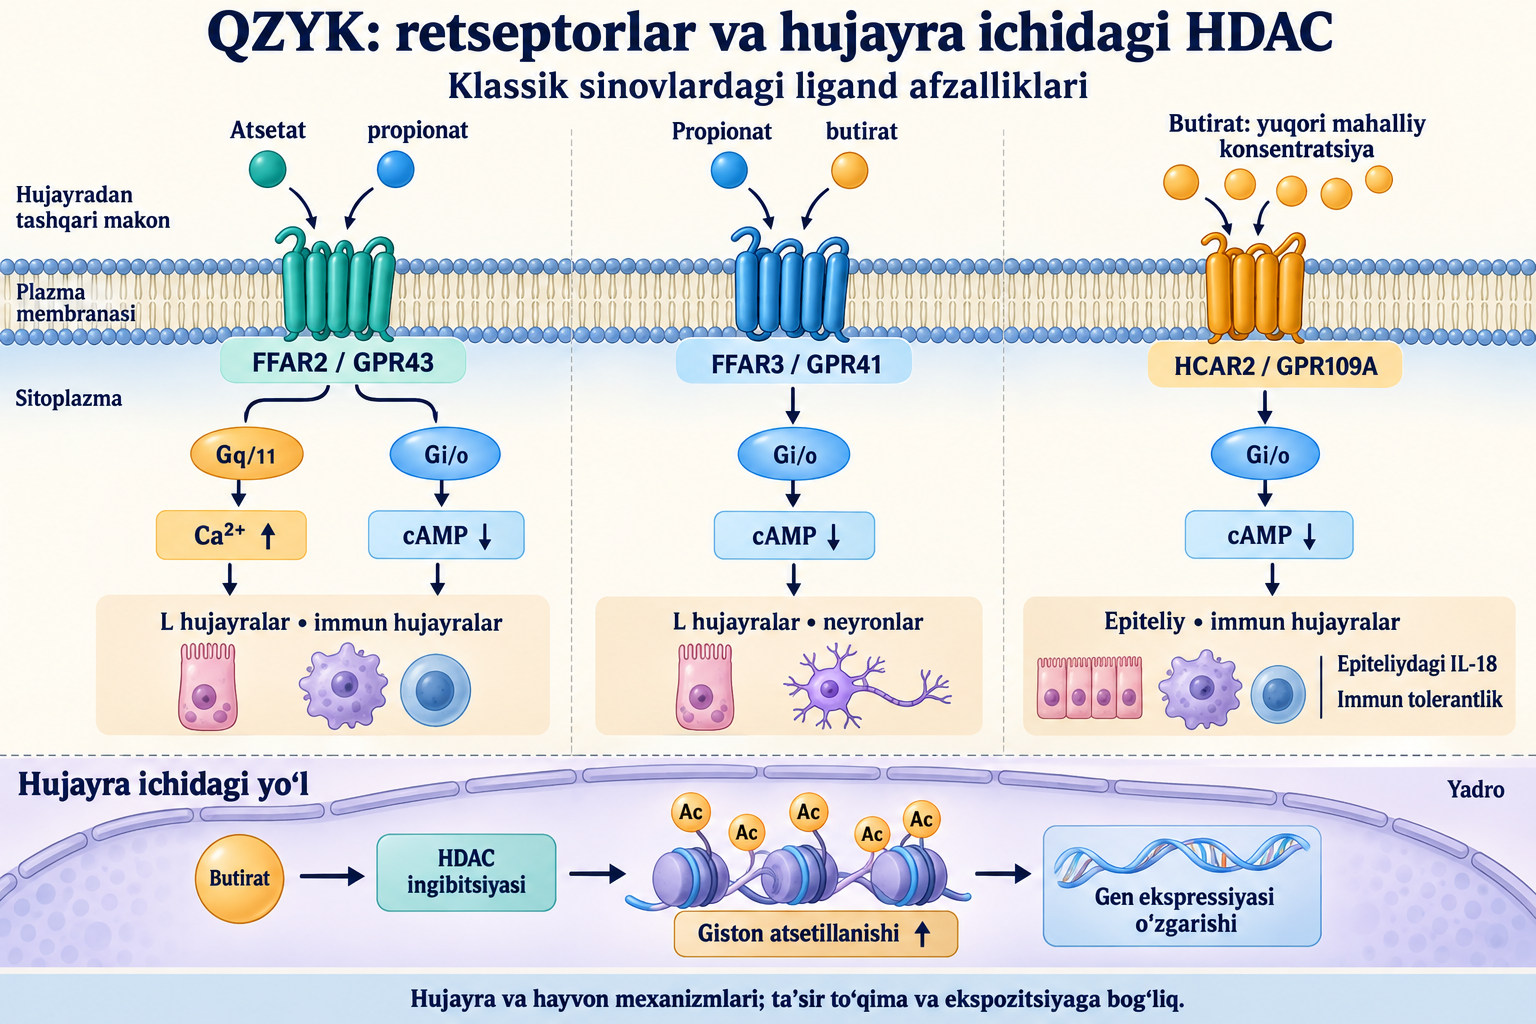
FFAR2, avval GPR43, asetat, propionat va boshqa qisqa karboksilatlarni taniydigan G-oqsilga bog‘langan retseptordir. Brown va hamkorlari (2003), Le Poul va hamkorlari (2003) dastlabki funksional tavsiflarni berdi. Ligandlarning nisbiy kuchi odam yoki hayvon retseptori, hujayra tizimi va tanlangan signal o‘lchoviga qarab o‘zgaradi. Funksional EC₅₀ni bevosita bog‘lanish doimiysi Kd bilan tenglashtirish mumkin emas.
Gq/11 fosfolipaza Cβni faollashtirishi mumkin: PIP₂ parchalanib IP₃ va DAG hosil qiladi. IP₃ endoplazmatik retikulumdan Ca²⁺ chiqishini, DAG va kalsiy protein kinaza C faolligini qo‘llab-quvvatlaydi. Gi/o yo‘li adenilatsiklazani susaytirib, cAMPni pasaytirishi mumkin; Gβγ va boshqa tarmoqlar ham qatnashadi. Bu ikki yo‘l retseptor faollashgandan keyin bir xil kuch va vaqtda ishlaydi degani emas.
Neytrofillarda QZYK va FFAR2 kemotaksis, faollanish va yallig‘lanish javobini o‘zgartiradi. Ichakdagi himoya bilan kuchaygan hujayraviy faollanish sharoitga qarab birga uchrashi mumkin; FFAR2ni barcha to‘qimada yallig‘lanishni o‘chiradigan tugma deb berish noto‘g‘ri. Retseptor ekspressiyasi, konsentratsiya va boshqa immun signallar natijani belgilaydi.
3.2. FFAR3/GPR41: Gi/o va nerv–endokrin javoblar
FFAR3, GPR41, odatda propionat va butiratga javob beruvchi Gi/o bilan bog‘langan retseptor sifatida tavsiflanadi. Gi/o adenilatsiklaza–cAMP yo‘lini susaytirishi mumkin. Asetatning faolligi, ligandlar tartibi va signal samaradorligi tizimga bog‘liq; bir jadvaldagi raqamlar barcha to‘qima uchun universal potensiya emas.
FFAR3 ichak endokrin hujayralari va ayrim periferik nerv tizimlarida metabolit ta’sirini sezishga yordam beradi. Simpatik, enterik va metabolik javoblar hayvon modellarida o‘rganilgan. Oziq, retseptor joylashuvi va kompensator yo‘llar o‘zgarsa natija farqlanadi. Har qanday FFAR3 faollashuvi ichak tranzitini bir xil sekinlashtiradi yoki butun organizm energiya sarfini qat’iy bir yo‘nalishda o‘zgartiradi deb xulosa qilish mumkin emas.
3.3. HCAR2/GPR109A va himoya qiluvchi IL-18
HCAR2, GPR109A, Gi/o bilan bog‘langan retseptor bo‘lib, niatsin va β-gidroksibutirat kabi ligandlarni ham taniydi. Ichak bo‘shlig‘idagi yuqoriroq mahalliy butirat konsentratsiyasi unga ta’sir qilishi mumkin; uni qondagi past butirat bilan yoki FFAR2/3ning har qanday funksional doza oralig‘i bilan tenglashtirmaymiz.
Singh va hamkorlari (2014) HCAR2 signali makrofag va dendrit hujayralarning IL-10, retinoid va tolerogen dasturlari, Treg bilan bog‘liq javoblar hamda kolonik epiteliydagi IL-18 orqali himoyaga hissa qo‘shishini ko‘rsatdi. TGFβ va atrofdagi boshqa signallar T-hujayra javobini shakllantiradi. Natijani faqat bitta hujayra yoki retseptorga bog‘lash mumkin emas.
Macia va hamkorlari (2015) GPR43 va GPR109A bilan bog‘liq tolali oziq ta’sirida inflammasoma–IL-18 yo‘li ichak gomeostazini qo‘llab-quvvatlashini ko‘rsatdi. Tajriba kontekstida GPR43 orqali kaliy chiqishi va membrana giperpolyarizatsiyasi NLRP3–kaspaza-1 faollashuvi hamda IL-18 yetilishiga aloqador edi. Demak bu ishni HCAR2 barcha NLRP3ni o‘chiradi va shu orqali IL-18ni kamaytiradi deb talqin qilish yo‘nalishni teskari beradi. Inflammasomaning himoyaviy yoki zararli ta’siri to‘qima, dozasi va kasallik bosqichiga bog‘liq.
3.4. GLP-1, PYY, to‘qlik va glukoza
Ichak L-hujayralari QZYK signallariga GLP-1 va PYY sekretsiyasi bilan javob berishi mumkin. Tolhurst va hamkorlari (2012) FFAR2ning GLP-1 ajralishidagi rolini ko‘rsatdi. QZYKning retseptor, hujayra metabolizmi va nerv yo‘llari orqali ta’siri birlashadi; uch kislota bir xil molyar dozada doimo teng gormon javobini bermaydi.
GLP-1 glukozaga bog‘liq insulin sekretsiyasi, glukagon, me’da bo‘shashi va to‘qlik yo‘llariga ta’sir qiladi. PYY, jumladan PYY₃₋₃₆, Y2 retseptori orqali nerv va periferik signallarga aloqador. Barcha ta’sir PYYning qon–miya to‘sig‘idan bevosita o‘tishini talab qilmaydi. Endogen sekretsiyaning o‘zgarishini farmakologik agonistlarning samarasi yoki odam β-hujayralarining isbotlangan qayta ko‘payishi bilan tenglashtirish mumkin emas. GLP-1 va oziq sekretsiya stimullari haqidagi material shu farqlarni batafsil yoritadi.
Chambers va hamkorlari (2015) maxsus inulin–propionat efiri orqali propionatni yo‘g‘on ichakka yetkazishni o‘rgandi. 60 kattadagi 24 haftalik aralashuv muayyan preparatning tana vazni va yog‘ to‘planishi bilan bog‘liq ko‘rsatkichlarini tekshirgan. Buni barcha inulin, har qanday QZYK kapsulasi yoki bir xil darajada vazn kamaytiruvchi universal retseptor ta’siri sifatida ko‘chirish mumkin emas.
3.5. Olfr78, jigar va retseptor yo‘llarining ajralishi
Pluznick va hamkorlari (2013) sichqonda Olfr78 asetat va propionatga javob berishi, renin ajralishi va qon bosimi tartibiga aloqadorligini ko‘rsatdi. Odamdagi mos retseptor OR51E2dir. Boshqa retseptorlar, dozalar va tomir javoblari bilan o‘zaro ta’sir mavjud; har bir QZYK mahsuloti qon bosimini bir xil tushiradi degan klinik xulosa kelib chiqmaydi.
Jigar propionatni propionil-KoA, metilmalonil-KoA va suksinil-KoA orqali metabolizmga kiritishi mumkin; biotin va B₁₂ bilan bog‘liq bosqichlar muhim. Suksinil-KoA glukoneogenez uchun uglerod manbai bo‘lishi mumkin. Asetat asetil-KoAga aylanishi, oksidlanish yoki lipid sintezida qatnashishi mumkin. Qaysi yo‘nalish ustun bo‘lishi oziqlanish va metabolik holatga bog‘liq. Barcha QZYKni FAS va ACCni har vaziyatda klinik darajada bostiradigan bir xil modda deb ko‘rsatish noto‘g‘ri.
Membrana retseptorlari bilan hujayra ichidagi butiratning HDACga ta’siri alohida yo‘llardir. Retseptor signali bo‘lishi HDAC bevosita shu retseptor orqali to‘xtaydi degani emas; butirat hujayraga kirishi va undagi yetarli konsentratsiya muhim.
4. HDAC, giston modifikatsiyalari va immun hujayralar
4.1. HDAC susayishi nimani anglatadi?
Ruxga bog‘liq giston deasetilazalar, HDAC, giston va boshqa oqsillarning lizinlaridan asetil guruhini olib tashlaydi. Asetillanish lizinning musbat zaryadini kamaytirib, xromatin aloqalarini o‘zgartiradi. Biroq transkripsiya faktorlarining mavjudligi, xromatinni qayta tuzuvchi komplekslar va boshqa modifikatsiyalar ham muhim; har bir asetillangan gen majburiy faollashmaydi.
Butirat, zaifroq darajada propionat, yetarli hujayra ichki konsentratsiyada ayrim HDAClarni susaytiradi. I sinfdagi HDAC1, HDAC2 va HDAC3 ko‘p o‘rganilgan. Asetat ularga teng bevosita ingibitor emas. Butiratni barcha I va IIa izoformalarga bir xil IC₅₀ bilan ta’sir qiluvchi kuchli umumiy ingibitor deb berish noto‘g‘ri. Sirtuinlar NAD⁺dan foydalanadi va ruxli HDAC bilan bir mexanizmni bo‘lishmaydi; metabolik holat ularning faoliyatini bevosita bloklashsiz ham o‘zgartirishi mumkin.
Karboksilat va katalitik cho‘ntak qisqa ingibitorlarning tanilishiga hissa qo‘shadi. Lekin barcha HDAC uchun bitta isbotlangan atomik kompleks, C4ning mutlaq ideal uzunligi yoki katalitik suvning to‘liq siqib chiqarilishini da’vo qilish tekshirilgan dalildan oshib ketadi. Davie (2003) sharhi va hujayra tajribalari ta’sirni bunday uydirma atomik aniqliksiz tushuntirishga yetarli. Asetil-KoAning asetiltransferazalarga ko‘proq yetkazilishi giston asetillanishini oshirishning deasetillanishni bloklashdan boshqa yo‘lidir.
4.2. FOXP3 va periferik Treg
Furusawa va hamkorlari (2013), Arpaia va hamkorlari (2013), Smith va hamkorlari (2013) sichqonlarda tartibga soluvchi T-hujayralarga ta’sirning bir-birini to‘ldiruvchi yo‘llarini ko‘rsatdi. Mos TGFβ va IL-2 muhitida butirat Foxp3⁺ hujayralarni qo‘llab-quvvatladi; Arpaia timusdan tashqari differensiatsiyani CNS1 enhanseri bilan bog‘ladi. Foxp3 promotor va boshqaruv sohalaridagi asetillanish, jumladan H3K27ac, shuningdek Foxp3 oqsilining asetillanishi va barqarorligi o‘rganildi.
Uch kislota bir-birini aynan takrorlamaydi: FFAR2 orqali kolon Treg sonini boshqarish HDAC orqali differensiatsiyani o‘zgartirishdan farq qiladi. Har ta’sir HCAR2ni talab qilmaydi, SMCT1 har bir T-hujayraning majburiy kirish transportyori emas. Treg IL-10 va TGFβ orqali ortiqcha javobni cheklashi mumkin, ammo keyingi yallig‘lanishdan qat’i nazar qaytmas differensiatsiya kafolati yo‘q. Odamda oziq antigeniga xos klinik tolerantlik alohida sinovdan o‘tishi lozim.
4.3. Gistondan boshqa nishonlar: p53, NFκB va tubulin
p53 asetillanishi uning barqarorligi, MDM2 bilan aloqasi, hujayra sikli, tiklanish va apoptoz dasturlariga ta’sir qiladi. HDAC ingibitorlari hujayra modellarida shu jarayonlarni o‘zgartiradi, lekin p53ning butunligi va boshqa boshqaruvchilar muhim; butirat har qanday mutant klonni yo‘q qiladi degan kafolat bermaydi.
NFκB/RelAning turli asetillanish joylari turli vazifa bajaradi. DNK bilan bog‘lanish, yadroda qolish va IκB bilan aloqa murakkab bo‘lib, ularni Lys310 asetillansa yallig‘lanish o‘chadi degan qoidaga yig‘ish mumkin emas: bu qoldiq transkripsion faollik uchun ham muhim. Muayyan yallig‘lanishga qarshi natija metabolik, retseptor va transkripsion yo‘llarning birikmasidir.
α-Tubulinning Lys40 asetillanishi mikronaycha tashkiliga aloqador; HDAC6 muhim tubulin deasetilazasidir. Zaif qisqa zanjirli ingibitor selektiv HDAC6 ingibitori bilan aynan bir kuchda ishlaydi degani emas. Vezikula tashilishi va hujayra qutblanishi tadqiqot uchun muhim, ammo butiratning barcha vaziyatda isbotlangan klinik foyda zanjiri emas.
4.4. Butirillanish, krotonillanish va β-gidroksibutirillanish
Asil-KoA molekulalari boshqa giston belgilarining donoridir. Butiril-KoA p300/CBP kabi asiltransferazalar orqali lizin butirillanishi, Kbu, uchun butiril guruhini yetkazadi. Krotonil-KoA to‘yinmagan Kcr belgisini beradi, uni ayrim YEATS domenlari taniydi. Bu modifikatsiyalar asetillanishning shunchaki kuchliroq shakli emas, alohida kimyoviy belgilar.
Fellows va hamkorlari (2018) mikrobiotani ichak epiteliyidagi giston krotonillanishi bilan bog‘ladi va HDAC1, HDAC2, HDAC3ning dekrotonilaza faoliyatini ko‘rsatdi. Butirat belgining olib tashlanishini susaytirib Kcrni oshirishi mumkin; undagi barcha uglerod bevosita qabul qilingan butiratdan kelishi shart emas.
Xie va hamkorlari (2016) Kbhb, lizin β-gidroksibutirillanishini keton β-gidroksibutirati va ochlik kabi metabolik holatlar bilan bog‘liq o‘rgandi. Uni C4 β-oksidlanishining L-3-gidroksibutiril-KoA oraliq mahsulotidan bevosita chiqarib bo‘lmaydi: keton almashinuvi, stereokimyo, hujayra bo‘limlari va donor hosil bo‘lishi farq qiladi. Belgining mavjudligi yoki transkripsiya bilan aloqasi klinik foydali qayta dasturlashni o‘zidan isbotlamaydi.
4.5. Th17, Treg va B-hujayralar
QZYK T-hujayra differensiatsiyasini sitokin muhiti, konsentratsiya va vaqtga qarab o‘zgartiradi. Park va hamkorlari (2015) HDAC hamda mTOR–S6K orqali tartibga soluvchi va effektor hujayralarga ta’sirni ko‘rsatdi. IL-17 har doim zararli emas, butirat Th17ni bitta STAT3/SMAD3 kaliti orqali har safar Tregga aylantirmaydi.
Kim va hamkorlari (2016) mikrob metabolitlari B-hujayra energiya dasturlari va IgA kabi antitanalar ishlab chiqarilishini qo‘llab-quvvatlashini ko‘rsatdi. Asetil-KoA, glikoliz, oksidlovchi fosforlanish va lipid sintezi plazma hujayrasiga differensiatsiya uchun ahamiyatli. Asetat va boshqa kislotalarning foydalanish yo‘llari farqlanadi; uchalasi ham ACSS2ning bir xil bevosita substrati emas. Antitana ishlab chiqarishni rag‘batlantirish barcha allergiya va yallig‘lanishning bostirilishi bilan teng emas.
5. To‘siq, mikroblarga qarshi himoya, saraton va ichak–miya aloqasi
5.1. Zich birikmalar va MUC2 shilliq qavati
Zich birikmalarga klaudinlar, okkludin va sitoskelet bilan bog‘langan ZO-1 adapterlari kiradi. Butirat tajriba tizimlarida ularning joylashishi va yig‘ilishini o‘zgartiradi. Peng va hamkorlari (2009) Caco-2 monoqavatida to‘siq ko‘rsatkichlarining yaxshilanishini AMPK bilan bog‘ladi. HIF, energiya holati va yallig‘lanish kinazalari ham qatnashadi; bitta majburiy MLCK/PKCθ yo‘li barcha tizimni tushuntirmaydi.
Qadahsimon hujayralar polimer MUC2 mutsinini ishlab chiqaradi. O-glikanlar, sekretsiya va qatlamlarning tashkil topishi mikroblarning epiteliyga yaqinlashishiga ta’sir qiladi. QZYK doza va yetilish holatiga qarab ekspressiya hamda ajralishni o‘zgartiradi, ammo ichki qatlamning mutlaq sterilligini yoki barcha glikozillanish nuqsonining tuzatilishini kafolatlamaydi.
TEER epiteliy qatlamining elektr qarshiligini o‘lchaydi. Mannitol, flyuoressent dekstran va boshqa zondlar o‘tkazuvchanlikning ayrim xususiyatlarini tekshiradi. Kulturadagi TEER ortishi bemorning tuzalishi bilan teng emas; foizlarni zond va modellar orasida erkin ko‘chirish mumkin emas. Marker chegaralari ichak o‘tkazuvchanligi va zich birikmalar haqidagi materialda batafsil tushuntirilgan.
5.2. LL-37, defensinlar va sekretor IgA
Schauber va hamkorlari (2003) QZYK ichak epiteliyida LL-37 katelitsidini ekspressiyasini o‘zgartira olishini ko‘rsatdi. hCAP18 oldingi oqsili va yetilgan peptid mikroblarga qarshi himoyada qatnashadi. CAMP genining ekspressiyasi yetilgan faol peptid miqdorini o‘lchash o‘rnini bosmaydi; butun ta’sirni HDAC bilan tushuntirish ham yetarli emas. β-Defensin javobi to‘qima va yallig‘lanish stimuliga bog‘liq.
Sekretor IgA plazma hujayrasi va epiteliy hamkorligini talab qiladi. J-zanjirli dimer IgA pIgRga bog‘lanadi, epiteliydan o‘tib, sekretor komponent bilan ajraladi. QZYK B-hujayra dasturlari va ayrim epiteliy jarayonlarini qo‘llab-quvvatlashi mumkin, lekin butun transsitozni asetat va propionatning majburiy bevosita FFAR2 ta’siriga bog‘lash mumkin emas. Mikroblar va toksinlarni immun cheklash antitana xosligi hamda shilliq qavat holatiga ham bog‘liq.
5.3. Kolorektal karsinogenez va hujayra dalilining chegarasi
Kolorektal o‘sma hujayra liniyalarida butirat CDKN1A/p21ni oshirib, G₁/S o‘tishini susaytirishi mumkin. BCL2 oilasi, sitoxrom c chiqishi, apoptosoma va kaspazalar o‘zgaradi; hTERT pasayishi muayyan modellar doirasida o‘rganilgan. p53 va o‘sma metabolizmiga bog‘liqlik farq qiladi, barcha o‘smalarni yo‘q qiladigan bitta kafolatlangan dastur yo‘q.
Sichqondagi AOM/DSS himoyasi, kulturadagi giston o‘zgarishi va oziq tolasi bilan saraton xavfi o‘rtasidagi kuzatuv aloqasi turli dalillardir. Tola faqat butiratni o‘zgartirmaydi; mutatsiyalar, immun muhit va doza ham natijaga ta’sir qiladi. Bu ishlar alohida butirat qo‘shimchasi bilan kolorektal saratonni davolash yoki oldini olish samaradorligini isbotlamaydi.
5.4. Qon–miya to‘sig‘i, mikrogliya va BDNF
QZYK qon metabolitlari, endokrin, immun va nerv yo‘llari orqali ichak–miya aloqasiga hissa qo‘shishi mumkin. Ichak bo‘shlig‘idagi konsentratsiya miyadagiga teng emas; epiteliy va jigar tizimli butirat ta’sirini cheklaydi.
Braniste va hamkorlari (2014) sichqonda mikrobiota yo‘qligini qon–miya to‘sig‘ining yuqoriroq o‘tkazuvchanligi hamda okkludin, klaudin-5 o‘zgarishlari bilan bog‘ladi. Kolonizatsiya va muayyan metabolik aralashuvlar bu ko‘rsatkichlarni o‘zgartirdi. Erny va hamkorlari (2015) mikroblar va QZYK mikrogliya yetilishi va faoliyatiga ta’sir qilishini ko‘rsatdi. Bu har bir kislota uning retseptoriga bevosita ta’sir qiladi yoki har mahsulot odamning miya to‘sig‘ini tiklaydi degan dalil emas.
Tajribaviy HDAC ingibitsiyasi BDNF, plastiklik va xotirani o‘zgartirishi mumkin, ko‘pincha endogen darajadan boshqa farmakologik ta’sirda. Natijani odam neyrogenezi, kognitiv kasallik yoki neyroyallig‘lanishni davolashga ko‘chirish alohida klinik tasdiqni talab qiladi.
6. Odamdagi tadqiqotlar, yetkazish va amaliy chegaralar
6.1. Diversion kolit va ichakning yallig‘lanish kasalliklari
Diversion kolitda ichak qismi najas oqimidan ajratilib, odatdagi mikrob substratlari va metabolitlardan mahrum bo‘ladi. Harig va hamkorlari (1989) to‘rt bemorda QZYK eritmasini kuniga ikki marta yuborishdan keyin simptom va endoskopik yallig‘lanish 4–6 haftada kamayganini tasvirladi. Gistologik yaxshilanish sekinroq va to‘liq emas edi. Bu mahalliy oziqlantirish gipotezasini qo‘llab-quvvatlovchi kichik ish; umumiy populyatsiyada ta’sir hajmini beradigan katta randomizatsiyalangan sinov emas.
Distal yarali kolitda Scheppach va hamkorlari (1992) kabi kichik klinik ishlar butirat klizmalarini o‘rgandi. Natijalar dizayn, birga davolash, konsentratsiya va kasallik faolligiga qarab turlicha. Ular barcha bemorda 65–75% barqaror remissiya yoki standart davoni almashtirishni asoslamaydi. Kron kasalligidagi kichik ochiq ish ham ishonchli qiyosiy samaradorlik dalili emas. Yallig‘langan epiteliy butiratga boshqacha javob berishi mumkinligi klinik natijani sog‘lom hujayradan taxmin qilishni qiyinlashtiradi.
6.2. Ta’sirchan ichak sindromi va ichak to‘sig‘i
Banasiewicz va hamkorlari (2013) ta’sirchan ichak sindromi bo‘lgan 66 kattada mikrokapsulalangan natriy butiratni o‘rgandi; ishtirokchilarning avvalgi davosi davom etdi. To‘rt va o‘n ikki haftada qorin og‘rig‘i tezligining ayrim ko‘rsatkichlari yaxshilandi. Lekin og‘riq og‘irligi, gaz va har simptomning barcha vaqtda bir xil yaxshilanishi ko‘rsatilmagan. Natijani simptomlar majburiy 50–65% kamayadi degan umumiy foizga aylantirish mumkin emas.
To‘siq haqidagi hujayra dalili klinik ishni to‘ldiradi, ammo zonulin pasayishi yoki o‘tkazuvchanlikning tuzalishi aynan sabab bo‘lganini isbotlamaydi. Tahlilning xosligi, tranzit, visseral sezgirlik, ovqat va boshqa davolar muhim. Nazoratsiz xabarlarda platsebo, tabiiy o‘zgarish va birga aralashuvlarni ajratib bo‘lmaydi. QZYKning mexanistik ehtimoli bilan muayyan mahsulotning klinik natijasi alohida baholanadi.
6.3. Semizlik, insulin sezgirligi va jigar
QZYK retseptorlari va ichak gormonlari ishtaha, yog‘ almashinuvi va glukoza tartibiga aloqador. Ammo hayvondagi foyda odamdagi har qo‘shimchada bir xil ta’sirni kafolatlamaydi. Bouter va hamkorlari (2018) og‘iz orqali butiratga ozg‘in odamlar bilan metabolik sindromli odamlar javobi farqlanganini ko‘rsatdi. Bu butirat barcha odamda insulin sezgirligini oshiradi degan da’voni cheklaydi.
Chambers va hamkorlari (2015) propionatni yo‘g‘on ichakka yetkazadigan maxsus inulin–propionat efirini o‘rgandi; uzoq aralashuvda 60 katta 24 hafta kuzatildi. Ishtaha, vazn va yog‘ to‘planishiga natijani erkin propionatga, har tolaga yoki har butirat kapsulasiga ko‘chirish mumkin emas. Mavjud ishlar HOMA-IR majburiy 25–35% tushishi, metabolik disfunksiya bilan bog‘liq jigar yog‘lanishi yoki diabet davolanishi kafolatini bermaydi. Jigar uglerod oqimi va yallig‘lanish dasturlarini o‘zgartirishi mumkin; klinik natija alohida tekshiriladi.
6.4. Tuzlar, qoplamalar va tributirin
Erkin butir kislotaning hid va ta’mi qabul qilishni qiyinlashtirishi mumkin. Lekin uni og‘iz orqali yetkazish mutlaqo imkonsiz, aynan 95%i bir joyda so‘riladi yoki yo‘g‘on ichakka aniq 0,1%i yetadi degan universal raqamlar asoslanmagan. Natriy va kalsiy tuzlari saqlash va qo‘llashga qulay; ajralish tezligini faqat tuz nomi belgilamaydi.
Mikrokapsula, lipid matritsa va ichakda eriydigan polimer qoplama turli texnologiyalar. Eudragit L va Sning erish chegaralari bir xil emas; ichak pHsi, tranzit va yallig‘lanish ajralishni o‘zgartiradi. Shu bois mikrokapsulalangan degan nom moddaning aynan bir segmentga to‘liq yetishini isbotlamaydi. Mahsulotning haqiqiy ajralish sinovi va klinik ma’lumotini ko‘rish kerak.
Tributirin glitserinning uch butirat qoldig‘iga ega triefiridir. Lipaza gidrolizining soddalashtirilgan tenglamasi:
Bu bir molekuladan uch butirat ekvivalenti chiqishini ko‘rsatadi, lekin ularning hammasi faqat yo‘g‘on ichakda ajraladi degani emas. Hazm, matritsa va doza so‘rilish joyi hamda tizimli ta’sirni o‘zgartiradi. Qiyosiy tadqiqotsiz tributirinni klizma yoki boshqa og‘iz mahsulotiga aynan tenglashtirish mumkin emas.
6.5. Rezistent kraxmal va boshqa tolalar
RS2 tabiiy granulali, RS3 pishirib sovitilganda retrogradatsiyalangan, RS4 kimyoviy o‘zgartirilgan rezistent kraxmaldir. Ruminococcus bromii kabi birlamchi parchalovchilar substratni boshqa mikroblar uchun ochib, butirat ishlab chiqaruvchilarning o‘zaro oziqlanishini qo‘llab-quvvatlashi mumkin. Javob boshlang‘ich mikrobiota, oziq qayta ishlanishi va miqdoriga bog‘liq; rezistent kraxmal nomi bir qat’iy butirat oshishini anglatmaydi.
Inulin va fruktooligosaxaridlarning β(2→1) bog‘lanishi hamda polimerlanish darajasi fermentatsiyaga ta’sir qiladi. Qisqa va uzun zanjirlar turli tezlikda ishlatilishi mumkin, ammo uzun inulin faqat distal ichakda fermentatsiyalanadi deb kafolatlab bo‘lmaydi. Ayrim odamlarda gaz, dam bo‘lish va noqulaylik ortadi. Pektin tuzilishi va metillanish darajasi ham muhim.
Psillium gel hosil qilishi va qovushqoqligi orqali najas va tranzitni o‘zgartiradi; fermentatsiyasi mikrobiota va mahsulotga qarab cheklangan hamda o‘zgaruvchan. Uni har odamda gazsiz va aynan bitta QZYK nisbatini beradigan tola deb ta’riflash noto‘g‘ri. Foydali klinik ta’sirni faqat butiratga tenglashtirish suv ushlanishi, qovushqoqlik va boshqa mikrob mahsulotlarini hisobga olmaydi.
6.6. Nurlanish proktiti va saraton immunoterapiyasi
Nurlanish shikastida epiteliy oziqlanishi, oksidlovchi stress va immun javob tadqiqot uchun muhim. Ammo oldini olish va yuzaga kelgan proktitni davolash alohida savollar. Maggio va hamkorlari (2014) prostata saratoni uchun nurlanish olayotgan 166 bemorda kunlik natriy butirat klizmalarini ko‘p markazli randomizatsiyalangan platsebo-nazoratli ishda tekshirdi. Sinov o‘tkir proktitning oldini olish samaradorligini ko‘rsatmadi. Shu aniq salbiy natijani umumiy himoya va’dasi bilan almashtirish mumkin emas. Dastlabki materialdagi PMID 28228514 esa nurlanish proktitiga emas, etanol berilgan sichqonlarda tributiringa tegishli edi.
Cannizzaro va hamkorlari (2025) prostata saratoni bo‘lgan ketma-ket 122 bemorda og‘iz orqali mikrokapsulalangan butiratning bir markazli istiqbolli tadqiqotini tasvirladi. Ochiq birlamchi annotatsiya va rasm izohlari parallel nazorat guruhisiz bitta kohortni ko‘rsatadi. Mualliflarning ichak simptomlari haqidagi ijobiy talqini proktit tezligining sababiy kamayishini isbotlamaydi; bu preparatni 2014 yildagi klizmalar bilan tenglashtirish mumkin emas.
Immun nazorat nuqtasi ingibitorlari bilan aloqa ham sharoitga bog‘liq. Nomura va hamkorlari (2020) PD-1 blokadasida najasdagi QZYK va klinik javob orasida bog‘liqlik topdi. Kuzatuv tadqiqoti qo‘shimcha javobni kuchaytirishini isbotlamaydi. Coutzac va hamkorlari (2020) yuqori tizimli QZYK bilan CTLA-4 blokadasining sustroq ta’siri orasidagi aloqalarni va tajribaviy mexanizmlarni tasvirladi. Ichak bo‘shlig‘i va qon, PD-1 va CTLA-4 bir xil emas. Butiratni onkologik davoga qo‘shishning umumiy foydali sinergiyasi tasdiqlanmagan.
6.7. Konsentratsiyani dozaga aylantirish
Eritma konsentratsiyasini yuborilgan modda miqdori bilan aralashtirmaslik kerak. Masalan, 80 mmol/l eritmaning 60 ml hajmida:
Suvsiz natriy butiratning molyar massasi 110,09 g/mol bo‘lsa, bu taxminan 528 mg tuzdir; erkin butir kislotaning 88,11 g/mol massasi bilan hisoblaganda taxminan 423 mg kislota ekvivalenti bo‘ladi. Tuzning butun massasini erkin kislota yoki elementar natriy massasi deb sanash noto‘g‘ri. Kalsiy tuzida stexiometriya va gidrat holati ham hisobga olinadi.
Bu birlik hisobining misoli, qabul qilish ko‘rsatmasi emas. Bo‘shliq konsentratsiyasi og‘iz orqali sutkalik dozaga teng emas; so‘rilish va ajralish vaqtini ham bilish lozim. Mavjud ma’lumot har vaziyatda 600–1200 mgni 6–12 hafta qo‘llash uchun universal samarali sxema bermaydi. Muayyan klinik ishning tuzi, matritsasi, birga davosi va yakuniy ko‘rsatkichi taqqoslanadi.
6.8. Chaqaloqlar, nekrotik enterokolit va allergiya
Muddatidan oldin tug‘ilgan chaqaloqda epiteliy va immun tizim yetilmagan; mikroblar, oziqlanish va kislorod holati kattadan farqlanadi. QZYK konsentratsiyasiga qarab qo‘llab-quvvatlovchi yoki shikastlovchi bo‘lishi mumkin. Tajribaviy mexanizmlar alohida butirat nekrotik enterokolit yoki o‘limni ikki baravar kamaytiradi degan klinik xulosani bermaydi. Kattalar dozasini chaqaloqqa oddiy ko‘chirish mumkin emas.
Berni Canani va hamkorlari (2016) sigir sutiga allergiyasi bo‘lgan chaqaloqlarda Lactobacillus rhamnosus GG qo‘shilgan chuqur gidrolizlangan aralashmani, butirat ishlab chiqaruvchi bakteriyalarni va tolerantlik hosil bo‘lishini bog‘ladi. Bu alohida butiratning randomizatsiyalangan ta’siri emas: oqsil matritsasi, probiotik va mikrobiota birga o‘zgargan. FOXP3, Th2 javobi va antigenga xos tolerantlik mexanizmlari tadqiqotga asos bo‘ladi; bolaning allergiyasini butirat bilan mustaqil davolashni isbotlamaydi.
6.9. Farmakokinetika va klinik yakuniy ko‘rsatkich
Kolonotsitlar butiratning katta qismini mahalliy ishlatadi, jigar esa keyingi metabolik filtrdir. Shu sababli ichak bo‘shlig‘idagi ko‘plik past tizimli konsentratsiya bilan birga bo‘lishi mumkin. So‘rilish yo‘li, mahsulot, doza va qon olish vaqtiga bog‘liq bo‘lmagan bitta 5–10 daqiqalik yarim chiqarilish muddatini barcha holatga belgilab bo‘lmaydi. Epiteliydagi ta’sirni bitta plazma o‘lchovi to‘liq ta’riflamaydi.
Edelman va hamkorlari (2003) rivojlangan o‘smalari bo‘lgan 20 bemorda butiratning og‘iz orqali qabul qilinadigan oldingi moddasi tributirinning klinik va farmakologik ishini o‘tkazdi. Tizimli butirat ta’siri o‘zgaruvchan bo‘ldi; obyektiv o‘sma javobi kuzatilmadi. Bu moddaning odamga yetishini o‘rganish klinik saratonga qarshi samaradorlik daliliga teng emasligini ko‘rsatadi.
Yetkazish joyi, ajralish, ko‘tara olish va kasallikka tegishli natija alohida tekshirilishi lozim. Ichak metabolizmini yaxshiroq tavsiflash simptom, remissiya, kasalxonaga yotish yoki yashash davomiyligi kabi klinik natijani almashtirmaydi.
Amaliy yakun
QZYK ta’sirini tushunish uchun uch jihat birga baholanadi: modda qaysi bo‘limga yetadi, hujayra uni qanday metabolizatsiya qiladi va aynan qaysi retseptor yoki xromatin yo‘li ishlaydi. Yetilgan kolonotsitga oziq bo‘lgan butirat bevosita ta’sirlangan ildiz hujayrasi bo‘linishi yoki ayrim o‘sma hujayralari o‘sishini susaytirishi mumkin. Tola, og‘iz tuzi, mikrokapsula va klizma bu ta’sirni bir xil takrorlamaydi. Mexanizmlar klinik savolni aniq qo‘yishga yordam beradi; odamda muayyan mahsulot va kasallik uchun javob qiyosiy tadqiqot bilan aniqlanadi.
Tez-tez beriladigan savollar
Nega butirat ayrim hujayralarni oziqlantiradi, boshqalarining bo‘linishini susaytiradi?
Yetilgan kolonotsitlar uni faol oksidlaydi. Kriptadagi himoyalangan va ayrim o‘sma hujayralari uni boshqacha metabolizatsiya qiladi; yetarli bevosita ta’sir HDAC hamda hujayra sikliga ta’sirni kuchaytiradi. Natija doza, yetib borish va metabolik holatga bog‘liq.
FFAR2/3 va HDAC bitta mexanizmmi?
Ular alohida yo‘llar. FFAR2/3 kalsiy va cAMP signallarini o‘zgartiradigan membrana retseptorlaridir. HDAC oqsillardan atsetil guruhlarini olib tashlaydi, hujayra ichidagi butirat esa ayrim fermentlarni ingibitsiya qiladi. Retseptor faollashuvi HDAC ingibitsiyasini isbotlamaydi.
Najasdagi butirat uning jami ishlab chiqarilishini ko‘rsatadimi?
Butun oqimni ishonchli o‘lchamaydi. Najas hosil bo‘lish, so‘rilish, mikroblar o‘rtasidagi metabolit almashinuvi va tranzitdan keyingi qoldiqni aks ettiradi. Past miqdor faol so‘rilish, yuqori miqdor esa foydalanish buzilishi bilan birga bo‘lishi mumkin.
Har qanday tola butiratni bir xil oshiradimi?
Yo‘q. Rezistent kraxmal, inulin, pektin va psillium tuzilishi hamda fermentatsiyasi bilan farq qiladi. Javob mikrobiota va dozaga bog‘liq; ta’sirning bir qismi qovushqoqlik va suv tutish bilan izohlanadi. Gaz va qorin dam bo‘lishi mumkin.
Tadqiqotlar ta’sirchan ichak yoki kolitdagi samarani isbotlaydimi?
Ayrim kichik tadqiqotlar muayyan simptom yoki mahalliy ta’sirni qo‘llab-quvvatlaydi, ammo mahsulot, birga olib borilgan davo va natijalar farq qiladi. Ular universal remissiya foizini bermaydi va standart davoni almashtirishni asoslamaydi.
Tributirin, mikrokapsula va klizma bir-birini almashtiradimi?
Yo‘q. Ajralish joyi va vaqti, so‘rilish hamda ko‘tara olish farq qiladi. Tributirin uchta butirat ekvivalentini berishi mumkin, lekin hammasi faqat yo‘g‘on ichakda ajraladi degani emas.
Universal doza va kurs muddati bormi?
Yo‘q. Eritma konsentratsiyasi kunlik og‘iz orqali dozaga, tuz massasi erkin kislota massasiga teng emas. Muayyan mahsulot, kasallik, natijalar va ko‘tara olish ma’lumotlari kerak; maqoladagi hisob davolash sxemasi emas.
Mexanizmlarni saraton, miya kasalliklari yoki chaqaloqlarga ko‘chirish mumkinmi?
Bevosita ko‘chirish asoslanmagan. Ma’lumotlarning katta qismi hujayra va hayvonlardan olingan, onkologik o‘zaro ta’sir davoga bog‘liq, chaqaloq fiziologiyasi esa boshqacha. Klinik foyda va xavfsizlik alohida tekshirilishi kerak.
Manbalar
- Cummings JH et al. Short chain fatty acids in human large intestine, portal, hepatic and venous blood. Gut. 1987;28:1221–1227.
- Roediger WE. Role of anaerobic bacteria in the metabolic welfare of the colonic mucosa in man. Gut. 1980;21:793–798.
- Reichardt N et al. Phylogenetic distribution of three pathways for propionate production within the human gut microbiota. ISME J. 2014;8:1323–1335.
- Duncan SH et al. The role of pH in determining the species composition of the human colonic microbiota. Environ Microbiol. 2009;11:2112–2122.
- Brown AJ et al. The orphan G protein-coupled receptors GPR41 and GPR43 are activated by propionate and other short chain carboxylic acids. J Biol Chem. 2003;278:11312–11319.
- Le Poul E et al. Functional characterization of human receptors for short chain fatty acids and their role in polymorphonuclear cell activation. J Biol Chem. 2003;278:25481–25489.
- Ganapathy V et al. Transporters and receptors for short-chain fatty acids as the molecular link between colonic bacteria and the host. Curr Opin Pharmacol. 2013;13:869–874.
- Donohoe DR et al. The microbiome and butyrate regulate energy metabolism and autophagy in the mammalian colon. Cell Metab. 2011;13:517–526.
- Donohoe DR et al. The Warburg effect dictates the mechanism of butyrate-mediated histone acetylation and cell proliferation. Mol Cell. 2012;48:612–626.
- Kaiko GE et al. The Colonic Crypt Protects Stem Cells from Microbiota-Derived Metabolites. Cell. 2016;165:1708–1720.
- Ferrer Picón E et al. Intestinal Inflammation Modulates the Epithelial Response to Butyrate in Patients With Inflammatory Bowel Disease. Inflamm Bowel Dis. 2020;26:43–55.
- Kelly CJ et al. Crosstalk between Microbiota-Derived Short-Chain Fatty Acids and Intestinal Epithelial HIF Augments Tissue Barrier Function. Cell Host Microbe. 2015;17:662–671.
- Rivera-Chávez F et al. Depletion of Butyrate-Producing Clostridia from the Gut Microbiota Drives an Aerobic Luminal Expansion of Salmonella. Cell Host Microbe. 2016;19:443–454.
- Byndloss MX et al. Microbiota-activated PPAR-γ signaling inhibits dysbiotic Enterobacteriaceae expansion. Science. 2017;357:570–575.
- Singh N et al. Activation of Gpr109a, receptor for niacin and the commensal metabolite butyrate, suppresses colonic inflammation and carcinogenesis. Immunity. 2014;40:128–139.
- Macia L et al. Metabolite-sensing receptors GPR43 and GPR109A facilitate dietary fibre-induced gut homeostasis through regulation of the inflammasome. Nat Commun. 2015;6:6734.
- Tolhurst G et al. Short-chain fatty acids stimulate glucagon-like peptide-1 secretion via the G-protein-coupled receptor FFAR2. Diabetes. 2012;61:364–371.
- Pluznick JL et al. Olfactory receptor responding to gut microbiota-derived signals plays a role in renin secretion and blood pressure regulation. Proc Natl Acad Sci USA. 2013;110:4410–4415.
- Davie JR. Inhibition of histone deacetylase activity by butyrate. J Nutr. 2003;133:2485S–2493S.
- Furusawa Y et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–450.
- Arpaia N et al. Metabolites produced by commensal bacteria promote peripheral regulatory T-cell generation. Nature. 2013;504:451–455.
- Smith PM et al. The microbial metabolites, short-chain fatty acids, regulate colonic Treg cell homeostasis. Science. 2013;341:569–573.
- Fellows R et al. Microbiota derived short chain fatty acids promote histone crotonylation in the colon through histone deacetylases. Nat Commun. 2018;9:105.
- Xie Z et al. Metabolic Regulation of Gene Expression by Histone Lysine β-Hydroxybutyrylation. Mol Cell. 2016;62:194–206.
- Park J et al. Short-chain fatty acids induce both effector and regulatory T cells by suppression of histone deacetylases and regulation of the mTOR–S6K pathway. Mucosal Immunol. 2015;8:80–93.
- Kim M et al. Gut Microbial Metabolites Fuel Host Antibody Responses. Cell Host Microbe. 2016;20:202–214.
- Peng L et al. Butyrate enhances the intestinal barrier by facilitating tight junction assembly via activation of AMP-activated protein kinase in Caco-2 cell monolayers. J Nutr. 2009;139:1619–1625.
- Schauber J et al. Expression of the cathelicidin LL-37 is modulated by short chain fatty acids in colonocytes: relevance of signalling pathways. Gut. 2003;52:735–741.
- Braniste V et al. The gut microbiota influences blood-brain barrier permeability in mice. Sci Transl Med. 2014;6:263ra158.
- Erny D et al. Host microbiota constantly control maturation and function of microglia in the CNS. Nat Neurosci. 2015;18:965–977.
- Harig JM et al. Treatment of diversion colitis with short-chain-fatty acid irrigation. N Engl J Med. 1989;320:23–28.
- Scheppach W et al. Effect of butyrate enemas on the colonic mucosa in distal ulcerative colitis. Gastroenterology. 1992;103:51–56.
- Di Sabatino A et al. Oral butyrate for mildly to moderately active Crohn's disease. Aliment Pharmacol Ther. 2005;22:789–794.
- Banasiewicz T et al. Microencapsulated sodium butyrate reduces the frequency of abdominal pain in patients with irritable bowel syndrome. Colorectal Dis. 2013;15:204–209.
- Chambers ES et al. Effects of targeted delivery of propionate to the human colon on appetite regulation, body weight maintenance and adiposity in overweight adults. Gut. 2015;64:1744–1754.
- Bouter KE et al. Differential metabolic effects of oral butyrate treatment in lean versus metabolic syndrome subjects. Clin Transl Gastroenterol. 2018;9:155.
- Maggio A et al. Daily sodium butyrate enema for the prevention of radiation proctitis in prostate cancer patients undergoing radical radiation therapy: results of a multicenter randomized placebo-controlled dose-finding phase 2 study. Int J Radiat Oncol Biol Phys. 2014;89:518–524.
- Cannizzaro R et al. Microencapsulated Sodium Butyrate in the Prevention of Acute Radiotherapy Proctitis: Single-Center Prospective Study. J Clin Med. 2025;14:4783.
- Nomura M et al. Association of Short-Chain Fatty Acids in the Gut Microbiome With Clinical Response to Treatment With Nivolumab or Pembrolizumab in Patients With Solid Cancer Tumors. JAMA Netw Open. 2020;3:e202895.
- Coutzac C et al. Systemic short chain fatty acids limit antitumor effect of CTLA-4 blockade in hosts with cancer. Nat Commun. 2020;11:2168.
- Berni Canani R et al. Lactobacillus rhamnosus GG-supplemented formula expands butyrate-producing bacterial strains that are linked to tolerance acquisition in infants with cow's milk allergy. ISME J. 2016;10:742–750.
- Edelman MJ et al. Clinical and pharmacologic study of tributyrin: an oral butyrate prodrug. Cancer Chemother Pharmacol. 2003;51:439–444.
- Schönfeld P, Wojtczak L. Short- and medium-chain fatty acids in energy metabolism: the cellular perspective. J Lipid Res. 2016;57:943–954.