Кишечная проницаемость: зонулин, клаудины и LPS — NutriFit
Кишечная проницаемость: зонулин, клаудины и транслокация LPS
Как слизь, IgA, клаудины, ZO и MLCK регулируют кишечный барьер; чем отличаются pore, leak и потеря клеток. Пути LPS/TLR4, ограничения тестов зонулина и L/M, реальные результаты исследований вмешательств.
Кишечный барьер — избирательный интерфейс, который одновременно всасывает питательные вещества, воду и электролиты, ограничивает контакт микробов с тканью и обеспечивает контролируемое представление антигенов иммунной системе. Повышенная проницаемость действительно встречается при целиакии, воспалительных заболеваниях кишечника, некоторых инфекциях, ишемии и лекарственном повреждении. Однако бытовое выражение «дырявый кишечник» не обозначает единую самостоятельную причину всех хронических болезней и не устанавливает диагноз по неспецифическим симптомам или одному анализу зонулина.
Важны три разных вопроса: что именно проходит через барьер, каким маршрутом и в каком количестве; повреждены ли клетки или изменилось только регулирование контактов; приводит ли наблюдаемое изменение к клиническим исходам. Для ионов, сахаров, белков, липополисахарида и живых бактерий ответы различаются. Связь воспаления с барьером часто двунаправленная: воспаление меняет контакты, а проникновение микробных продуктов способно поддерживать воспаление.
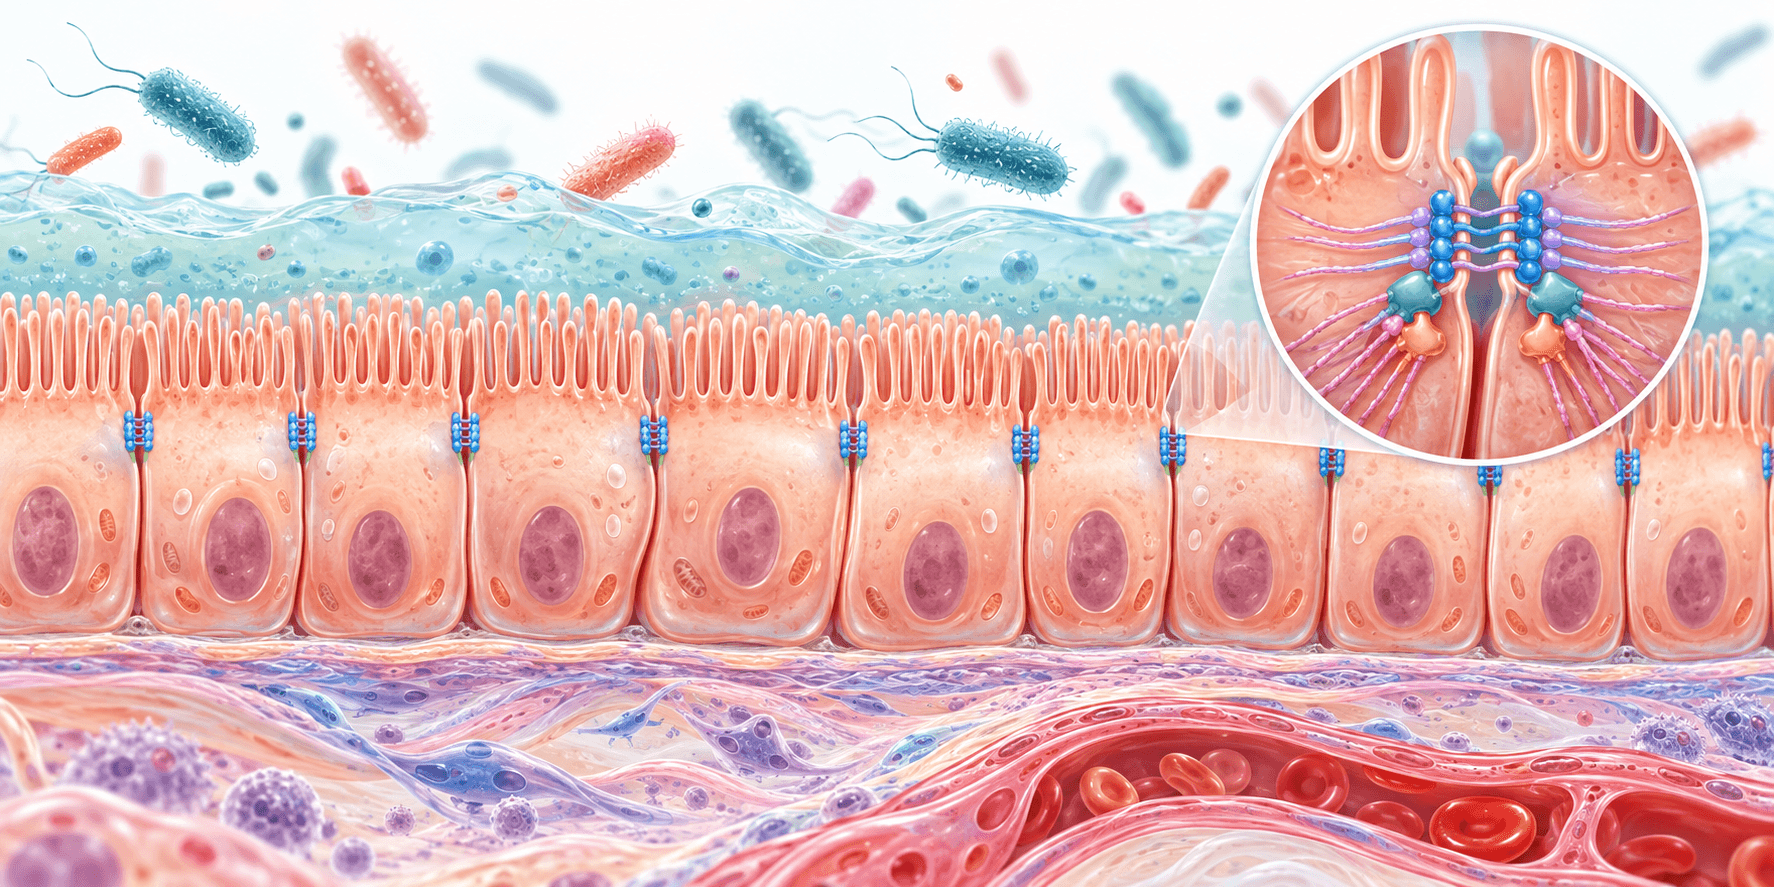
Многоуровневая организация барьера
До эпителия, в эпителии и под ним
Преэпителиальная защита включает неперемешиваемый водный слой, слизь, секреторный IgA, антимикробные молекулы и ферменты щёточной каймы. Слизь уменьшает контакт бактерий с мембраной, но не является абсолютно непроницаемой стеной: её свойства зависят от отдела кишки, состава, гидратации, микробного метаболизма и воспаления.
Эпителиальный слой состоит из энтероцитов, бокаловидных и энтероэндокринных клеток, клеток Панета, M-клеток и tuft-клеток. Клетки Панета особенно характерны для крипт тонкой кишки; M-клетки над лимфоидными структурами участвуют в контролируемом переносе антигенов. Колон и тонкая кишка различаются архитектурой и клеточным составом. Оценка площади слизистой около 32 м² не является универсальной константой: она зависит от способа учёта складок, ворсинок и микроворсинок. Полезнее понимать функциональные уровни, чем выводить риск из площади.
Под эпителием находятся lamina propria, внеклеточный матрикс, капилляры, лимфатические сосуды и клетки GALT: макрофаги, дендритные клетки, T- и B-лимфоциты, плазматические клетки. Энтеральная нервная система и иммунные сигналы координируют секрецию, моторику и защиту. Портальный и лимфатический отток различаются, что существенно для переноса бактериальных продуктов. В норме барьер не исключает всякое антигенное представление; он ограничивает нагрузку и поддерживает толерантность.
MUC2, слизь и антимикробная защита
MUC2 — крупный гелеобразующий муцин бокаловидных клеток. Богатые пролином, треонином и серином участки несут многочисленные O-гликаны; сиалированные и сульфатированные цепи влияют на заряд, удержание воды и взаимодействие с микробами. Цистеиновые домены и дисульфидные связи обеспечивают полимеризацию. C-концевая димеризация и N-концевая сборка формируют сеть, а условия кальция и pH регулируют упаковку и раскрытие после секреции. N-концевые тримеры описаны в биохимических моделях; фиксированную «тетрамерную сетку» нельзя распространять на всю зрелую слизь.
В тонкой кишке слой обычно более рыхлый и подвижный. В толстой кишке описаны плотный внутренний и более рыхлый внешний слои. Johansson (2008) показал исключение бактерий из внутреннего Muc2-зависимого слоя в исследуемых моделях, но это не означает безусловную стерильность каждого участка человеческой кишки или универсальную толщину 30–50 мкм. Обработка образца, отдел и заболевание меняют измерения. Микробное расщепление гликанов может быть частью нормальной экосистемы; при недостатке доступных субстратов и нарушенной секреции баланс изменяется.
Панетовские HD5 и HD6 дополняют слизь. HD5 обладает антимикробной активностью, тогда как HD6 может формировать наносети, ограничивающие внедрение бактерий; все дефензины не следует изображать одинаковыми мембранными порами. RegIIIγ хорошо изучен у мышей, человеческий родственный REG3A нельзя автоматически считать полностью тождественным. Vaishnava (2011) исследовал пространственное разделение бактерий и эпителия; указанная там дистанция не является нормативом человеческой кишки. Мурамилдипептид распознаётся NOD2, а не непосредственно TLR: пути NOD2 и TLR/MyD88 взаимодействуют, но это разные сенсорные системы. Лизоцим, секреторная фосфолипаза A2 и кальпротектин действуют разными способами; кальпротектин также активно выделяется нейтрофилами при воспалении, поэтому его нельзя приписывать только клеткам Панета.
Секреторный IgA
Плазматические клетки lamina propria вырабатывают преимущественно полимерный IgA с J-цепью. Базолатеральный полимерный иммуноглобулиновый рецептор pIgR связывает этот комплекс и переносит его через эпителиальную клетку к апикальной стороне. После расщепления рецептора его внеклеточный фрагмент, секреторный компонент, остаётся связанным с IgA, повышая устойчивость комплекса и участвуя во взаимодействии со слизью и микробами. Это направленный трансцитоз, а не патологическая утечка.
sIgA нейтрализует токсины и вирусы, ограничивает адгезию и может агглютинировать бактерии. Во время транспорта возможна внутриклеточная нейтрализация. Обычно иммунное исключение не требует сильного воспаления; однако утверждение об абсолютной невозможности любых комплементных или воспалительных взаимодействий IgA слишком широко. Секреторный компонент и гликаны дают также антиген-независимые взаимодействия. Фиксированное количество граммов в сутки или единый Kd не требуется для объяснения механизма и не служит диагностическим порогом.
Обновление и закрытие эпителиальных дефектов
Lgr5-положительные клетки у основания крипт дают начало клеткам эпителия. Wnt/β-катенин и R-спондины поддерживают нишу; источниками сигналов выступают как эпителиальные, так и мезенхимальные клетки. Notch/HES1 и ATOH1 участвуют в выборе абсорбтивной и секреторной дифференцировки. Градиенты BMP ограничивают пролиферацию и поддерживают созревание. Эти сигналы зависят от отдела и состояния ткани.
Многие энтероциты обновляются за несколько дней, но это не единый срок жизни всех клеток: клетки Панета и другие популяции имеют иной оборот. Экструзия может включать апоптотические и живые клетки; соседние клетки перестраивают актомиозин и контакты под удаляемой клеткой. Поэтому слущивание само по себе не означает открытую дыру. При чрезмерной гибели или нарушении реституции возникает нерегулируемый путь через дефект эпителия, отличающийся от изменения отдельных плотных контактов.
Архитектура контактов и разные пути проницаемости
Апикальный соединительный комплекс включает плотные контакты, адгезивные контакты E-кадгерин/катенины и десмосомы. Плотные контакты регулируют парацеллюлярный транспорт и помогают поддерживать полярность; адгезия и цитоскелет необходимы для целостности всего слоя. Нельзя приписывать общую барьерную функцию только одной группе белков.
При электронной микроскопии видны зоны тесного сближения мембран; это не обязательное буквальное слияние липидных бислоёв. Криоскалывание обнаруживает ветвящиеся тяжи контактов. Число тяжей не даёт простого линейного прогноза электрического сопротивления: состав клаудинов, их организация и динамика имеют существенное значение.
Клаудины и селективный поровый путь
Клаудины имеют четыре трансмембранные спирали, внеклеточные структурные элементы и цитоплазматические концы. Их cis- и trans-взаимодействия формируют контактные тяжи. Внеклеточная поверхность определяет зарядовую и размерную селективность; C-концевые PDZ-связывающие мотивы связывают белки со скаффолдами. Конкретные мотивы и свойства различаются между паралогами.
Для структурного контекста Suzuki (2014) исследовал мышиный клаудин-15, PDB 4P79. PDB 5B2G содержит человеческий клаудин-4 в комплексе с C-концевым фрагментом энтеротоксина C. perfringens; это не свободный клаудин и не полная структура кишечного контакта. Такие записи позволяют понимать складку и взаимодействие, но не вычислять из одной кристаллической структуры клиническую проницаемость.
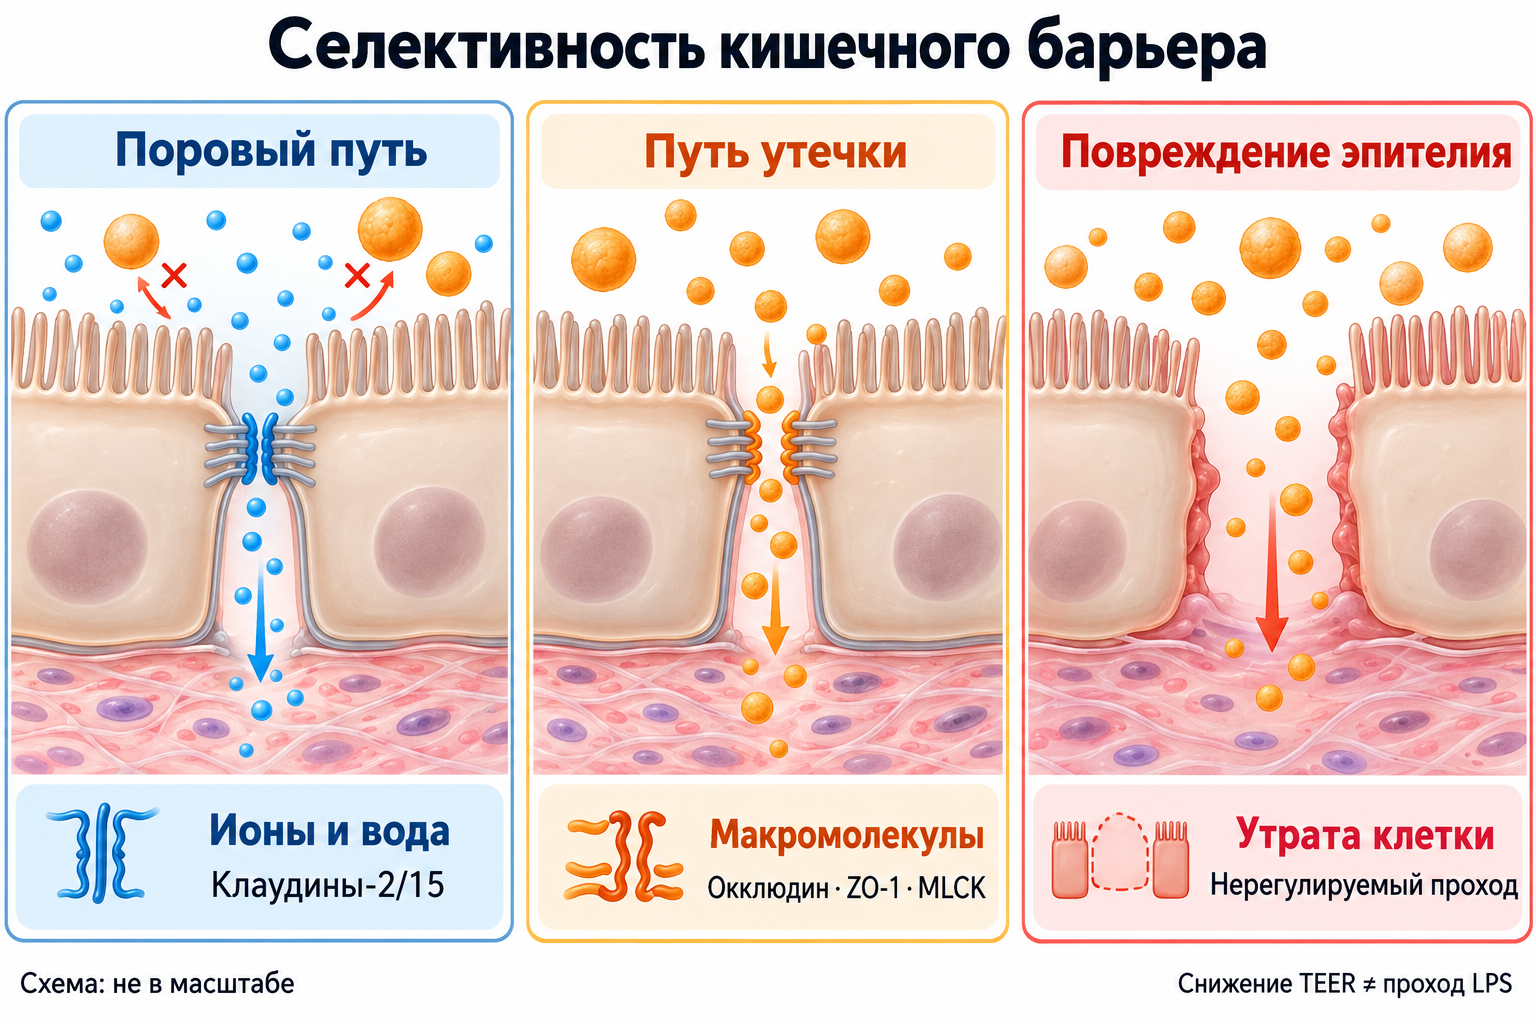
Клаудины-2 и -15 образуют селективные катионные пути; клаудин-2 также связан с переносом воды. Заряженные остатки, включая исследованный Asp65 клаудина-2, влияют на селективность. Перенос натрия через клаудин-15 способствует его рециркуляции для нутриентного котранспорта. Экспрессия зависит от сегмента, возраста и воспаления; клаудин-2 не ограничен во всех условиях исключительно криптами. Его увеличение может снизить электрическое сопротивление и изменить транспорт воды, но узкая катионная пора не превращается автоматически в проход для LPS или бактерии.
Клаудины-1, -3, -4 и -8 участвуют в ограничении определённых потоков; термин «герметизирующий» зависит от клеточного контекста, партнёров и измеряемого вещества. Клаудин-4 нельзя считать универсальным блокатором всех ионов и макромолекул. Он и ряд других клаудинов взаимодействуют с CPE; полноразмерный токсин формирует повреждающий поровый комплекс. Клаудин-5 прежде всего важен для эндотелиальных барьеров, включая ГЭБ, и не заменяет кишечные клаудины. Летальная потеря жидкости у Cldn1-дефицитных мышей в работе Furuse (2002) была связана с эпидермальным барьером; из этого опыта нельзя делать вывод о доказанной кишечной причине смерти.
Окклюдин, трицеллюлин и ZO
Окклюдин — четырёхпроходный белок семейства tight-junction-associated MARVEL proteins. Контактные тяжи могут формироваться без него, но регулируемая утечка и клеточная сигнализация изменяются. PDB 1WPA представляет только человеческий цитоплазматический фрагмент 413–522, а не полноразмерный мембранный окклюдин. Фосфорилирование, взаимодействие с ZO-1 и эндоцитоз зависят от конкретного сайта и стимула: «все Ser/Thr удерживают, любое Tyr немедленно разрушает» — чрезмерное правило. Tyr398/Tyr402 изучались как регуляторные сайты, но потеря контакта не всегда заканчивается протеасомной деградацией.
Трицеллюлин/MARVELD2 организует зоны схода трёх клеток и вместе с ангуллинами ограничивает макромолекулярный транспорт. MarvelD3 участвует в стрессовой сигнализации. Размеры центральной трубки и границы массы трассера — свойства конкретной модели, а не единый клинический отсекатель в 4 кДа. Мутации MARVELD2 могут иметь тканеспецифические последствия, включая слуховые; не каждый вариант означает универсальную кишечную болезнь.
ZO-1, ZO-2 и ZO-3 — цитоплазматические MAGUK-скаффолды с PDZ-, SH3- и GUK-подобными доменами. PDZ1 связывает C-концы клаудинов; PDZ2 поддерживает взаимодействия скаффолдов; PDZ3 взаимодействует с определёнными партнёрами, включая JAM. GUK-подобный домен работает как структурный узел, а не обычная гуанилаткиназа. C-концевые регионы связывают актин. PDB 2H3M — отдельный PDZ1 ZO-1, а 3SHW — PDZ3-SH3-GUK-супрамодуль с пептидом connexin-45; это не полная решётка всех ZO-белков.
Beutel (2019) показал роль фазового разделения ZO-белков в организации контактов. Конденсация локально концентрирует партнёров, а механические условия и состав меняют сборку. Она не означает, что все контакты человека возникают за универсальное число секунд или что полимеризация клаудинов невозможна в любой экспериментальной системе без PDZ1.
JAM-A/F11R имеет Ig-подобные внеклеточные домены, один трансмембранный участок и цитоплазматический хвост. Он участвует в адгезии, полярности через Par-3/Par-6/aPKC и взаимодействии с афадином. PDB 1F97 — растворимая часть мышиной JAM, не полный человеческий мембранный комплекс. Лейкоцитарные интегриновые партнёры зависят от члена семейства: JAM-A связывают с LFA-1, JAM-B — с VLA-4, JAM-C — с Mac-1. Нельзя приписать все эти взаимодействия одной JAM-A. Трансмиграция и восстановление контактов регулируются, поэтому диапедез не всегда оставляет хронический дефект.
MLCK и актомиозин
MYLK кодирует несколько изоформ. В кишечном эпителии важны длинные MLCK около 210–215 кДа; короткая гладкомышечная форма около 130 кДа не является названием длинной эпителиальной киназы. MLCK1 предпочтительно локализуется у perijunctional actomyosin ring; MLCK2 имеет отличия в локализации и функции. Работа Chanez-Paredes (2024) сочетала механистические исследования с анализом биопсий подвздошной кишки при болезни Крона.
Ca²⁺/кальмодулин активирует киназу; фосфорилирование регуляторной лёгкой цепи миозина по Ser19 и, в соответствующих условиях, Thr18 регулирует миозин-II. Упрощённая реакция:
MLC+ATPMLCKpMLC+ADP.
Формула показывает один акт фосфорилирования, а не полную двухсайтовую стехиометрию. RhoA/ROCK и миозинфосфатаза также регулируют фосфорилирование; ROCK не следует изображать обязательным прямым активатором самой MLCK. Актомиозиновое напряжение меняет организацию контактов и эндоцитоз окклюдина. При TNF-зависимой утечке исследован caveolin-зависимый маршрут. Модель «кольцо вырывает все клаудины и расширяет каждую щель до 20 нм» не описывает все стимулы.
Поровый путь, утечка и утрата клеток
Поровый путь имеет высокую ёмкость для малых зарядово-селективных веществ. Путь утечки пропускает более крупные вещества с меньшей ёмкостью и зависит от динамики контактов. Нерегулируемый путь появляется при эрозии, гибели или утрате клеток. Трансцеллюлярный перенос через транспортёры и везикулы существует отдельно. Эти пути могут изменяться независимо.
Электрическое сопротивление TEER преимущественно чувствительно к ионным потокам. Для культуры клеток площадь-нормированное сопротивление определяют как:
TEER=(Rsample−Rblank)A.
Здесь R — сопротивление в Ω, A — площадь монослоя в см², TEER имеет единицы Ω·см². Для трассера в контролируемой системе можно оценить:
Papp=AC01dtdQ.
Q — количество вещества в принимающем компартменте, C₀ — исходная донорская концентрация. При Q в моль, C₀ в моль/см³ и A в см² результат выражается в см/с. Формула предполагает подходящие условия sink, стабильность трассера и учёт отбора проб. Снижение TEER не доказывает увеличение переноса белка, LPS или живых бактерий; необходимы отдельные трассеры и контроль жизнеспособности.
Зонулин: биологическая гипотеза и аналитическая проблема
Tripathi (2009) идентифицировал изученный человеческий зонулин как нерасщеплённый предшественник гаптоглобина-2. «Pre-HP2» в этом контексте относится к предшественнику до разделения α- и β-цепей и не требует сохранения сигнального пептида в секретируемом белке. Зрелый гаптоглобин связывает свободный гемоглобин; архитектура его полимеров зависит от HP-фенотипа. HP1 и HP2 дают фенотипы Hp1-1, Hp2-1 и Hp2-2. Фиксированная дата возникновения HP2 «два миллиона лет назад исключительно у Homo sapiens» не нужна для механизма и не должна подаваться как установленная молекулярная константа.
Zot V. cholerae послужил историческим контекстом поиска эндогенного регулятора, но функциональный аналог не равен доказанной последовательностной гомологии всего белка. Для pre-HP2 описаны PAR2-зависимость и EGFR-трансактивация в экспериментальных системах. Это не доказывает, что pre-HP2 сам является протеазой, расщепляющей PAR2, или что каждый участок одной линейной цепи PLC→Ca²⁺→PKCα→AP-2 установлен у человека in vivo. PLC расщепляет PIP2 на IP3 и DAG; IP3 связан с мобилизацией Ca²⁺ из ЭПР, а DAG/Ca²⁺ регулируют классические PKC. Эти общие элементы сигнализации нельзя превращать в гарантированный десятикратный кальциевый всплеск или универсальный эндоцитоз всех белков контакта. ZO-1 — цитоплазматический скаффолд: эндоцитоз мембранного окклюдина и перераспределение ZO-1 различаются.
Lammers (2008) исследовал глиадин, CXCR3 и высвобождение зонулина. Глиадин содержит устойчивые к пищеварению пептиды; 33-мер α-глиадина и p31–43 имеют разные иммунологические и клеточные свойства, поэтому их нельзя автоматически объявлять идентичными CXCR3-лигандами. Целиакия включает HLA-зависимую адаптивную реакцию на деамидированные глиадиновые эпитопы и тканевую трансглутаминазу, а не только раскрытие контактов. Краткий ответ модели на глиадин не устанавливает хроническую глютен-индуцированную болезнь у любого здорового человека. Контакт бактерий может менять барьерные сигналы, однако гипотеза защитного «промывания» не доказывает, что всякий дисбиоз означает массивную гиперсекрецию pre-HP2.
Цитокины и обратная связь
TNF может увеличивать экспрессию длинной MLCK и регулировать актомиозин; IFNγ меняет чувствительность эпителия и трафик белков через JAK/STAT и связанные пути. RhoA/ROCK воздействует на регуляцию миозинфосфатазы, включая MYPT1. IL-1β способен изменять транскрипцию MLCK и контактов через NF-κB/MAPK в модельно-зависимых условиях. IL-13/STAT6 регулирует клаудин-2 в определённых системах. Поровая диарея, контактная утечка и клеточная гибель — разные результаты. Не каждое воздействие TNF вызывает каспазное уничтожение эпителия, и не всякое воспаление необратимо; доза, длительность, клеточный тип и восстановление имеют значение.
LPS: химия, перенос и распознавание
Не всякий LPS одинаков
LPS находится во внешней мембране многих грамотрицательных бактерий. Липид A — мембранный якорь; кор содержит Kdo и другие сахара; O-антиген представляет вариабельную цепь. Некоторые формы lipooligosaccharide не имеют длинного O-антигена. Классический E. coli lipid A имеет фосфорилированный дисахарид глюкозамина и шесть ацильных цепей. Число, длина и расположение цепей, фосфатные группы и вид хозяина меняют активность TLR4. Тетра- и пентаацилированные варианты могут быть слабыми агонистами или антагонистами, но нельзя ранжировать все грамотрицательные бактерии по одной универсальной «токсичности».
LPS — амфифильное, агрегирующее и связывающееся с белками вещество; его масса не фиксирована в 10–20 кДа. Кишечная щелочная фосфатаза может дефосфорилировать определённые LPS, а липопротеины, LBP, CD14 и тканевые ферменты меняют доступность и инактивацию. Обнаруженное количество и биологическая активность не тождественны.
Контактная утечка и липид-ассоциированный транспорт
Утрата эпителиальной целостности может увеличить доступ LPS и других продуктов к ткани. Однако радиус клаудинной поры не равен радиусу любой утечки, и размер в дальтонах не полностью задаёт транспорт агрегатов. Нельзя считать, что любое снижение TEER обеспечивает беспрепятственный проход всех мицелл LPS.
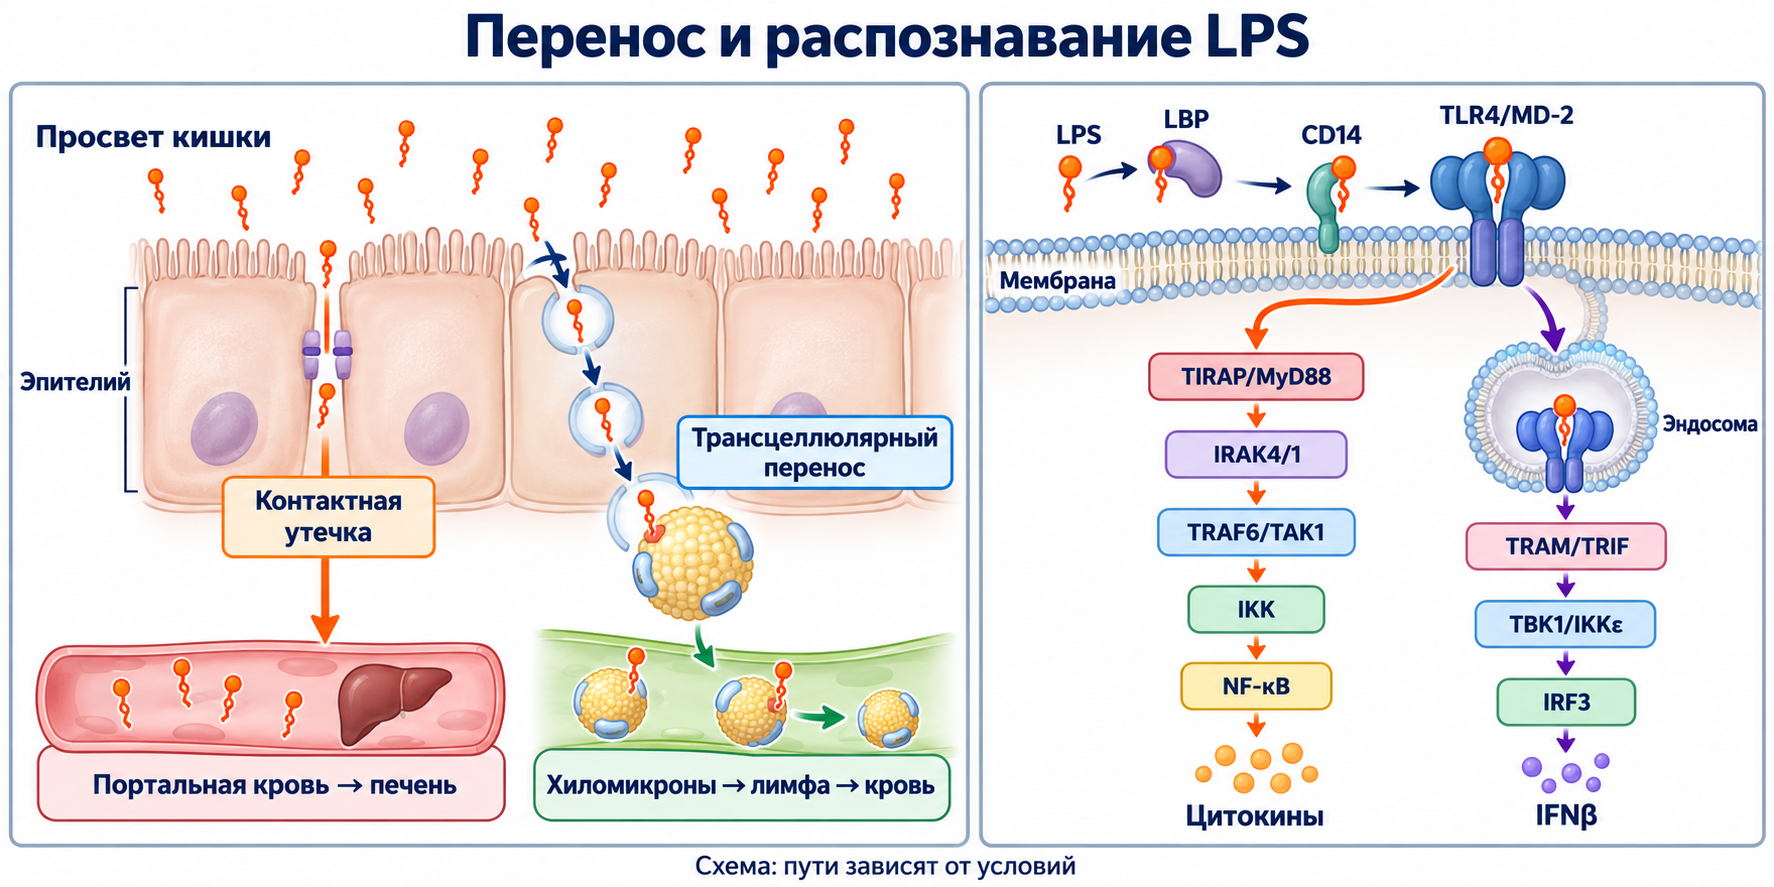
Ghoshal (2009) исследовал Caco-2 и животные модели и показал связь образования хиломикронов с выходом клеточно-ассоциированного LPS. ApoB-48/MTP-зависимая сборка липопротеинов и лимфатический отток помогают объяснить этот маршрут. Это не доказательство единственной последовательности «желчная мицелла→CD36→гидрофобное ядро» для каждого LPS у здорового человека. Амфифильный LPS может ассоциироваться с поверхностью липопротеина; изображение обязательного захоронения в триглицеридном ядре вводит в заблуждение. Лимфа поступает через грудной проток в венозную систему, тогда как портальный маршрут сначала достигает печени. Хиломикронные остатки впоследствии также захватываются печенью.
Cani (2007) изучал главным образом мышей, высокожировой рацион и длительную экспериментальную инфузию LPS. Определение «метаболическая эндотоксинемия» в этой работе не является валидированным универсальным диагностическим порогом у человека. Постпрандиальные изменения разных анализов зависят от пищи, времени, связывания LPS и преаналитики. Они не доказывают, что любой жир вреден или что вся инсулинорезистентность вызвана кишечной транслокацией.
LBP–CD14–TLR4/MD-2
LBP способствует извлечению и переносу LPS на CD14, а затем к MD-2/TLR4. Мембранный CD14 имеет GPI-якорь, растворимый CD14 поддерживает взаимодействия в клетках с низким собственным CD14. Концентрация белков и липопротеинов влияет на усиление или ограничение сигнала; LBP не только «детектор токсина». MD-2/LY96 формирует гидрофобный карман. Park (2009), PDB 3FXI, показал, как классический гексаацилированный LPS стабилизирует димер рецепторных комплексов: часть цепей находится в кармане, выступающая цепь и полярные контакты помогают взаимодействию с соседним TLR4. Эта структурная модель не описывает одинаково все LPS.
Схематическая сборка:
2(TLR4:MD−2:LPS)⟶(TLR4:MD−2:LPS)2.
Это запись ассоциации, а не стехиометрия переноса липидов или необратимой химической реакции.
На плазматической мембране TIRAP/MyD88 формируют сигнальную платформу с IRAK4/IRAK1. TRAF6 и K63-убиквитиновые платформы с TAB/TAK1 регулируют IKKα/IKKβ/NEMO и MAPK. Фосфорилирование IκBα по Ser32/Ser36 способствует его убиквитинированию и протеасомному распаду; NF-κB, включая p50/p65, получает доступ к ядру. Это не обязательное прямое полиубиквитинирование одной только TAK1. Экспрессия TNF, IL6, CXCL8 и других генов зависит от клеточного типа и дополнительных сигналов.
После CD14-связанного эндоцитоза TLR4 эндосомальные TRAM/TRIF активируют TBK1/IKKε и IRF3, поддерживая IFNβ и дополнительные ответы. TRIF также связан с NF-κB; две ветви не изолированы. Прайминг NLRP3 и pro-IL1β не равен полной сборке инфламмасомы и секреции зрелого IL-1β: часто нужен дополнительный сигнал. У внутриклеточного LPS есть отдельное распознавание человеческими caspase-4/5 и мышиной caspase-11, поэтому TLR4 не единственный возможный сенсор.
Органные последствия: механизмы и пределы переноса
Печень и метаболические ткани
Портальный поток доставляет продукты кишечника в печень, где клетки Купфера и другие системы участвуют в клиренсе. TLR4-зависимые сигналы могут поддерживать воспаление. Seki (2007) показал в мышиных моделях роль звездчатых клеток, снижение BAMBI и усиление чувствительности к TGFβ через MyD88/NF-κB. BAMBI — псевдорецептор, а не обычный субстрат киназы. Это помогает понять фиброгенез, но не доказывает, что каждый повышенный LBP вызывает необратимый MASH. Фиброз может регрессировать при устранении причин; фенотипы макрофагов не сводятся к переключателю M1/M2. Метаболическая болезнь печени включает избыток субстратов, липотоксичность, генетику и иммунные факторы, а не одну кишечную ось.
В адипоцитах и мышцах воспалительные JNK/IKK и другие киназы могут менять IRS–PI3K–Akt–GLUT4. Важно различать виды и контекст фосфорилирования: мышиному IRS1 Ser307 соответствует человеческий Ser312. Copps (2010) показал, что замена мышиного Ser307 на аланин усиливала инсулинорезистентность в определённых моделях. Следовательно, этот остаток не универсальный ингибиторный выключатель; наличие серинового фосфорилирования само по себе не доказывает блокаду инсулинового рецептора. Результат зависит от участка, времени, ткани и сочетания модификаций.
Сосуды и мозг
LPS/цитокиновые воздействия могут усиливать VCAM-1, ICAM-1, E-селектин, лейкоцитарное взаимодействие и редокс-стресс. NOX2 и NOX4 не одинаковы: NOX4 часто связан с H2O2 и может иметь защитные функции в определённых системах. Реакция NO с супероксидом образует пероксинитрит, а изменения BH4 и белковых тиолов способны повлиять на eNOS. Механистический контекст разобран в материале о разобщении eNOS. Атерогенез требует учитывать удержание ApoB-липопротеинов, их модификации, сосудистую стенку и иммунитет; LPS не является единственной необходимой причиной бляшки.
Экспериментальная эндотоксиновая нагрузка может менять церебральный эндотелий, клаудин-5/окклюдин, микроглиальные ответы и поведение. Сигнал может передаваться через цитокины, эндотелий, нервные маршруты и циркумвентрикулярные зоны без обязательного массового входа LPS в паренхиму. Микроглия имеет разнообразные состояния. Данные о BDNF, нейрогенезе, кинурениновом пути, амилоиде или α-синуклеине в моделях не устанавливают, что неспецифическое повышение зонулин-ELISA у человека вызывает депрессию, болезнь Альцгеймера или Паркинсона.
Толерантность и аутоиммунитет
Контролируемое антигенное представление, дендритные клетки, Treg/Foxp3, TGFβ и ретиноидные сигналы поддерживают оральную толерантность. Воспалительная среда меняет иммунный ответ; Th17-программы могут быть как защитными, так и повреждающими, а IL-22 не является исключительно патологическим цитокином. Молекулярная мимикрия требует доказать эпитопы, перекрёстную реакцию и причинный вклад. Предположения о пищевом казеине, тиреопероксидазе, миелине или цитруллинированных антигенах нельзя превращать в установленную универсальную цепь «проницаемость→Хашимото/рассеянный склероз/ревматоидный артрит». Для целиакии адаптивная генетически обусловленная реакция лучше определена, но и она не сводится к одному контакту.
Что измеряют лабораторные исследования
Сахарные пробы
Лактулоза и маннитол используются как дифференциальные трассеры; маннитол — сахарный спирт, а не моносахарид. Меньший размер и большая суммарная абсорбция маннитола не означают, что он исключительно проходит через трансцеллюлярные «поры щёточной каймы». Оба маркера могут иметь парацеллюлярные компоненты. Экскреция зависит от доступной поверхности, проницаемости, моторики, разведения и функции почек.
Для вещества x процент восстановления рассчитывается:
Fx=100DxCu,xVu,L/M=FMFL.
Cᵤ — концентрация в собранной моче, Vᵤ — её объём, D — принятая доза в согласованных единицах. L/M безразмерно. Например, при восстановлении 0,6% лактулозы и 12% маннитола отношение равно 0,05. Это арифметический пример, а не универсальный патологический порог. Деление сырых концентраций без нормирования разных доз может дать другой результат.
Время сбора и состав раствора определяются протоколом. Раннее и позднее окна, лактулоза/рамноза, сукралоза и многосахарные тесты исследуют разные части тракта и имеют свои ограничения. Работа Camilleri о здоровых участниках показывает влияние доставки и времени; пятичасовой сбор не гарантирует чистую изоляцию тонкой кишки. HPLC и LC-MS/MS позволяют измерять сахара, но аналитика не отменяет преаналитику. Универсальных границ L/M 0,025–0,030 или 0,050 для всех методов нет. Азид натрия и другие лабораторные консерванты не являются домашним способом проведения теста; сбор выполняют по инструкции лаборатории.
Зонулин: сигнал набора не равен pre-HP2
Scheffler (2018) обнаружил, что широко применяемый коммерческий ELISA не определял recombinant pre-HP2 так, как ожидалось; антитела распознавали другие белки, включая properdin как кандидат. Ajamian (2019), опубликованный в PLOS ONE, исследовал два набора и нашёл проблемы обнаружения pre-HP2, а в иммунопреципитатах — гаптоглобин/C3 и другие компоненты. Кандидат, связанный антителом, не обязательно единственный количественный аналит набора, и эти результаты нельзя превращать в правило «каждый тест точно измеряет properdin».
Поэтому число «зонулина» в нг/мл требует проверки конкретного производителя, антител, стандарта, матрицы и аналитической валидации. Связь иммунореактивного сигнала с метаболической болезнью не доказывает ни идентичность белка, ни открытие контактов. Для кала и сыворотки нельзя автоматически переносить референсы. Пределы 38–45 или 60–80 нг/мл не являются общими клиническими границами кишечной проницаемости. Разработка специфических моноклональных методов возможна, но «LC-MS/MS с антителом к сигнальному пептиду» нельзя объявлять уже установленным универсальным клиническим стандартом. Идентификация белка масс-спектрометрией и валидированный количественный тест — разные задачи.
Повреждение клеток и эндотоксиновые маркеры
I-FABP/FABP2 — цитозольный белок энтероцитов, который может выходить в кровь при повреждении. Измерение зависит от времени, почечного клиренса, метода и выраженности процесса. Он не различает с абсолютной точностью некроз, ишемию и другие причины повреждения; единый предел 150 пг/мл не устанавливает диагноз. Цитруллин связан с функцией и массой тонкокишечных энтероцитов, но также с питанием, воспалением, почечным превращением в аргинин и состоянием пациента. Порог около 20 мкмоль/л изучался в отдельных контекстах кишечной недостаточности, а не как универсальная диагностика «leaky gut».
LAL использует каскад лизата амебоцитов мечехвоста; EAA использует нейтрофил-зависимую хемилюминесценцию цельной крови — это разные анализы. Матрица, липопротеиновое связывание, загрязнение, ингибирование и усиление сигнала влияют на LAL. Эндотоксиновые единицы EU отражают активность относительно стандарта и не имеют универсального пересчёта в нг каждого бактериального LPS. EAA исследовался прежде всего при критических состояниях; его показатели нельзя автоматически переносить на низкоуровневую пищевую эндотоксинемию.
LBP — белок острой фазы, а sCD14 отражает несколько иммунных и метаболических процессов. Ни один не является золотым стандартом специфической кишечной транслокации. Синтез печенью, инфекции из других источников, ожирение, воспаление и клиренс влияют на уровни. EndoCAb-IgG/IgM зависит от иммунного ответа, прошлого контакта и метода; снижение IgM не доказывает один сценарий «истощения», а высокий IgG — обязательно текущую хроническую утечку. Антитела к окклюдину и пищевые IgG-панели не являются валидированной универсальной проверкой барьера.
Измерение
Что оно может показать
Что из него не следует
TEER культуры/ткани
Ионная проводимость слоя
Самостоятельное доказательство переноса LPS или бактерий
Трассерный поток, сахарные пробы
Перенос конкретных молекул в заданном протоколе
Универсальная причина симптомов или локализация без ограничений
«Зонулин» ELISA
Иммунореактивность конкретного набора
Надёжное количество pre-HP2 и диагноз по общему порогу
I-FABP
Сигнал повреждения энтероцитов
Только некроз или точная степень утечки контактов
Плазменный цитруллин
Контекст функции/массы энтероцитов
Прямое измерение плотных контактов
LAL/EAA
Метод-зависимая эндотоксиновая активность
Обязательный кишечный источник и равенство методов
Эндоскопия, биопсии, воспалительные и инфекционные исследования отвечают на вопросы о конкретных заболеваниях. Ussing-камеры и клеточные модели помогают разделять маршруты, но не превращаются автоматически в повседневный диагностический тест. Симптомы, кровь в стуле, снижение массы, анемия, ночная диарея и другие клинические признаки требуют оценки причин, а не назначения панели из экспериментальных маркеров.
Восстановление барьера: от механизма к клиническим данным
Глутамин
Энтероциты используют глутамин для энергетического обмена и биосинтеза. Глутаминаза даёт глутамат; образование α-кетоглутарата поддерживает TCA. GFAT использует азот глутамина в гексозаминовом пути, UDP-GlcNAc служит донором OGT; O-GlcNAc, HSF1 и шапероны связаны с клеточным стрессом. Однако строгое правило «70% энергии, O-GlcNAc только ZO-1 и гарантированное удержание контакта» не следует из этих общих путей. Эффекты конкретной модификации и HSP зависят от модели.
Zhou (2018/2019) провёл восьминедельное рандомизированное исследование у отобранных взрослых с постинфекционным IBS-D и повышенной проницаемостью. Использовали 5 г трижды в день; клинические и барьерные показатели улучшились относительно плацебо. Это аргумент для дальнейшей оценки именно такой популяции, а не доказательство лечения любой усталости, аутоиммунного заболевания или всех вариантов СРК. Доза 15 г/сут не равна 0,3–0,5 г/кг для каждого взрослого: для 70 кг последняя запись означает 21–35 г/сут. Не следует подменять изученную схему арифметически несогласованной «средней дозой».
Бутират
Ферментация доступных волокон и резистентного крахмала образует короткоцепочечные жирные кислоты. Бутират используется колоноцитами; окисление потребляет кислород и поддерживает локальную гипоксию, важную для экологии просвета. Kelly (2015) показал связь микробных метаболитов, эпителиального HIF и барьерной функции в моделях. PHD/VHL-регуляция HIF, ингибирование HDAC и сигнализация FFAR2/GPR43, FFAR3/GPR41 и HCAR2/GPR109A — разные механизмы.
Через HCAR2 в экспериментальных условиях регулируются IL-10, Treg и эпителиальный IL-18. Это нельзя свести к обязательному подавлению любой NLRP3-активности: инфламмасомные ответы могут поддерживать защиту или повреждение в зависимости от ткани и стадии. Гистоновая ацетиляция и экспрессия контактов также контекстны; больше бутирата не всегда лучше для каждой клетки, особенно при доступе к пролиферирующей крипте. Физиологическое образование в просвете, натриевая соль, трибутирин и микрокапсулированный препарат различаются доставкой. Механизмы не устанавливают универсальную лечебную дозу 500–1000 мг дважды в день.
Цинк-карнозин
Полапрецинк — комплекс цинка и L-карнозина. Работы с повреждёнными монослоями и животными описывают реституцию, пролиферацию и защитные эффекты. Цинк имеет структурные и регуляторные функции; в Cu/Zn-SOD каталитическое редокс-превращение связано с медью, тогда как цинк поддерживает структуру. Поэтому дополнительный цинк не является универсальным прямым антиоксидантом. TGFβ/Smad и миграция могут участвовать в определённых системах, но не доказывают восстановление всех ворсинок у человека.
В Mahmood (2007) десять здоровых добровольцев участвовали в перекрёстном испытании с пятидневным индометацином. ZnC давали по 37,5 мг дважды в день; измеряли лактулозу/рамнозу. Это короткая модель лекарственного повреждения, а не испытание универсального синдрома. Масса комплекса и элементарного цинка различны; долгий избыток цинка может нарушать обмен меди. Нельзя переносить результат на длительную комбинированную схему без соответствующих данных.
Полифенолы и микробные эффекты
Берберин, кверцетин и куркумин исследовались в клеточных и животных системах по AMPK, Rho/MLCK, PKC, NF-κB и контактным белкам. Их действие не ограничено одним селективным белком; AMPK не просто «конкурирует» с MLCK за одну реакцию, а куркумин не гарантирует полное подавление NF-κB при обычном пероральном приёме. Биодоступность, метаболиты и концентрация в опыте существенны. Контекст берберина и AMPK помогает отличать механизм от лечебного эффекта. Тучноклеточные и антиоксидантные эффекты кверцетина не означают доказанной диагностики или терапии барьерного дефекта по зонулину.
Lacticaseibacillus rhamnosus GG, ранее Lactobacillus rhamnosus GG, имеет штаммовые эффекты; p40 и p75 — изученные белки. Для p40 показан путь ADAM17→высвобождение HB-EGF→EGFR/Akt в клетках и мышах (Yan, 2013), а не обязательное прямое связывание p40 с EGFR. Эффекты purified protein, живого штамма и многокомпонентной добавки различаются. Нельзя переносить их на каждый пробиотик или автоматически приписывать BB-12 те же p40/p75.
Akkermansia muciniphila использует муцин и взаимодействует с экосистемой слизи. Plovier (2017) изучал пастеризованную бактерию и Amuc_1100 в мышиных моделях; TLR2-сигналы и метаболические эффекты поддерживают гипотезу, но не гарантируют «утолщение стерильного слоя» у каждого человека. Depommier (2019) — небольшое пилотное человеческое исследование, 40 включённых и 32 завершивших, с метаболическими конечными точками. Оно не доказывает профилактику всех заболеваний через герметизацию контактов. Штамм, жизнеспособность, пастеризация и условия производства имеют значение.
Ларазотид
Ларазотид ацетат/AT-1001 — исследуемый октапептид GGVLVQPG. Его описывают как регулятор плотных контактов/антагонист зонулиновых эффектов, но точный рецепторный механизм не следует изображать полностью установленным конкурентным связыванием с одним универсальным «рецептором зонулина». Локальное действие и фармакология отличаются от нутрицевтического стека.
В исследованиях при целиакии результаты по симптомам и проницаемости не были одинаковыми. В испытании Kelly (2013) с 184 участниками не было значимого различия L/M между ларазотидом и плацебо, хотя отдельные симптомные/иммунные показатели отличались. Leffler (2015) изучал 342 взрослых с сохраняющимися симптомами на безглютеновой диете; разные дозы не дали простой линейной зависимости. Спонсор сообщил в 2022 году, что промежуточный анализ фазы III не поддержал продолжение испытания. Эти данные исключают утверждение о доказанной универсальной блокаде сахарной экскреции или заменителе безглютеновой диеты. Сведения о продолжающихся исследованиях и регистрации требуют отдельной актуальной проверки; здесь препарат не предлагается как установленное лечение самостоятельного «leaky gut».
В более раннем испытании Leffler (2012) 86 участников получали 0.25, 1, 4 или 8 мг трижды в день, с глютеновой нагрузкой 2.4 г/сут или без неё, 14 дней. Высокая вариабельность L/M не позволила доказать эффект на проницаемость; некоторые меньшие дозы дали сигнал по симптомам. В испытании 2015 года первичной точкой были симптомы, а не универсальное закрытие барьера: 0.5 мг трижды в день показали преимущество, 1 и 2 мг — нет. Это различие доз и конечных точек важно при оценке общей гипотезы.
Подход
Поддерживающее основание
Главный предел вывода
Глутамин
Отобранная IBS-D популяция и клеточный метаболизм
Не все варианты СРК и не любая хроническая болезнь
Волокна/бутират
Экология просвета, HIF, HDAC, рецепторы SCFA
Препараты и доставка различны; единой восстановительной дозы нет
Цинк-карнозин
Модели репарации и короткий NSAID crossover
Малый опыт не подтверждает многомесячный стек
Берберин/кверцетин/куркумин
Механистические эффекты в моделях
Экспозиция и клинические исходы требуют отдельных данных
LGG/p40, Akkermansia
Штаммовые и белковые механизмы; пилотные данные
Модельный белок не равен любому коммерческому пробиотику
Ларазотид
Испытания при целиакии
Неодинаковые конечные точки и остановка фазы III
Лечение установленной причины
Диагноз, симптомы и клинические исходы
Нельзя заменить экспериментальной панелью или добавками
Клинический смысл без универсального протокола
Восстановление начинается с причины: целиакии, IBD, инфекции, ишемии, лекарственного повреждения или другого установленного заболевания. Строгая безглютеновая диета необходима при целиакии; её нельзя назначать всем по зонулину, а начало исключения до диагностики может затруднить обследование. Эмульгаторы изучались в животных и небольших человеческих экспериментах, но это не основание объявлять каждый разрешённый компонент прямым лизатором MUC2. Достаточное питание, индивидуально переносимые волокна, коррекция дефицитов и пересмотр повреждающих воздействий имеют контекст; антибиотики, пробиотики и добавки требуют конкретного обоснования.
Схема из шести добавочных этапов — глутамин, бутират, цинк, берберин/куркумин, пробиотик и тотальная элиминация — не проходила как целый протокол валидированное клиническое испытание. Даже положительный результат отдельного продукта не доказывает пользу сочетания, длительности и порядка. Цель лечения должна включать значимый для пациента исход, а не только нормализацию экспериментального маркера.
Метод и ограничения материала
Материал подготовлен 8 октября 2026 года как повествовательное научное изложение с адресной проверкой первичных структурных записей, аналитических работ и отдельных механистических и клинических исследований. Использованы доступные первичные статьи, записи и абстракты; часть полных текстов была недоступна. Различаются экспериментальные модели, человеческие ассоциации, испытания вмешательств и доказательства клинических исходов. Систематический поиск всей литературы, GRADE, внешний peer review, новые эксперименты и валидация диагностической панели не выполнялись. Биология контактов убедительна, но универсальный молекулярный диагноз и восстановительный стек из неё не следуют.
Частые вопросы
Доказывает ли повышенный зонулин «дырявый кишечник»?
Нет. Необходимо знать, какой белок распознаёт набор, матрицу и валидацию. Сигнал неспецифичного иммунного теста не устанавливает диагноз или источник LPS.
Означает ли низкий TEER, что через эпителий проходят бактерии?
Нет. TEER отражает преимущественно ионную проводимость; макромолекулы и бактерии требуют отдельных измерений.
Есть ли универсальная граница L/M?
Нет. Доза, время сбора, используемые сахара, транзит и функция почек влияют на результат; отношение рассчитывают по долям восстановленной дозы.
Можно ли объединить глутамин, бутират и пробиотики в обязательный протокол?
Отдельные исследования не подтверждают универсальную комбинацию, порядок, дозу или длительность. Причина заболевания и клинический результат важнее изменения одного маркера.
Заменяет ли ларазотид безглютеновую диету?
Представленные экспериментальные исследования этого не доказывают. Результаты по симптомам и L/M различались; ларазотид не следует подавать как установленную замену диеты.