
Разобщение eNOS: BH4, окислительный стресс и артериальная жёсткость
Доменный перенос электронов, BH4/BH2 и DHFR, редокс-модификации eNOS и путь NO–cGMP. Сосудистая механика, FMD/cfPWV, биомаркеры и пределы клинического рекуплинга.
Доменный перенос электронов, BH4/BH2 и DHFR, редокс-модификации eNOS и путь NO–cGMP. Сосудистая механика, FMD/cfPWV, биомаркеры и пределы клинического рекуплинга.
Эндотелиальная NO-синтаза (eNOS, продукт гена NOS3) связывает состояние сосудистого эндотелия с образованием оксида азота (NO). При согласованной работе её доменов электроны NADPH обеспечивают окисление L-аргинина до L-цитруллина и NO. При разобщении часть восстановительной мощности расходуется на образование супероксида вместо продуктивного синтеза NO. Это одновременно ослабляет защитную сигнализацию и может усиливать окислительный стресс.
Кофактор тетрагидробиоптерин (BH4), его окисленная форма 7,8-дигидробиоптерин (BH2), доступность аргинина и редокс-модификации белка определяют разные стороны этого процесса. Разобщение не означает обязательный распад каждого димера, полное прекращение NO во всём организме или единственную причину артериальной жёсткости. Сосудистая дисфункция включает также расходование NO другими источниками активных форм кислорода, изменения гладких мышц, воспаление и перестройку матрикса.
Ниже рассмотрены молекулярная архитектура, реакции и компартменты, а затем измерения и вмешательства. Клеточный механизм, результат на сосудистой ткани человека, изменение FMD или скорости пульсовой волны и снижение частоты клинических событий — разные уровни доказательства. Их смешение превращает правдоподобную биохимию в необоснованные диагностические пороги и схемы лечения.
Человеческий NOS3 расположен в локусе 7q36.1; канонический белок UniProt P29474 содержит 1203 аминокислоты. Каждый мономер имеет массу около 133 кДа, а функциональный комплекс обычно представляет собой гомодимер. N-концевая оксигеназная часть связывает гем, L-аргинин и BH4. C-концевая редуктазная часть содержит участки связывания FMN, FAD и NADPH. Между ними расположен кальмодулин-связывающий сегмент и гибкая область, допускающая относительные движения доменов. Границы доменов приблизительны и зависят от определения конструкта; их нельзя понимать как жёсткие перегородки в белке.
Восстановительные эквиваленты идут по маршруту NADPH → FAD → FMN → гем. NADPH передаёт гидрид на FAD; флавины позволяют соединить двухэлектронное восстановление с последовательными одноэлектронными переносами. В продуктивном димере FMN-содержащая часть одного мономера взаимодействует с оксигеназной частью другого. Поэтому схема, замыкающая весь поток только на гем того же мономера, упускает важную межмономерную организацию.
Кальций/кальмодулин способствует освобождению FMN-домена из закрытых состояний и его взаимодействию с гемовым партнёром. Фермент попеременно принимает конфигурации, удобные для получения электронов от FAD и их передачи гему; он не застывает в единственном «раскрытом» положении. Зависимость от кальция меняется при фосфорилировании и связывании регуляторов. Универсального порога цитозольного кальция 100–200 нМ, автоматически включающего любой eNOS, нет.
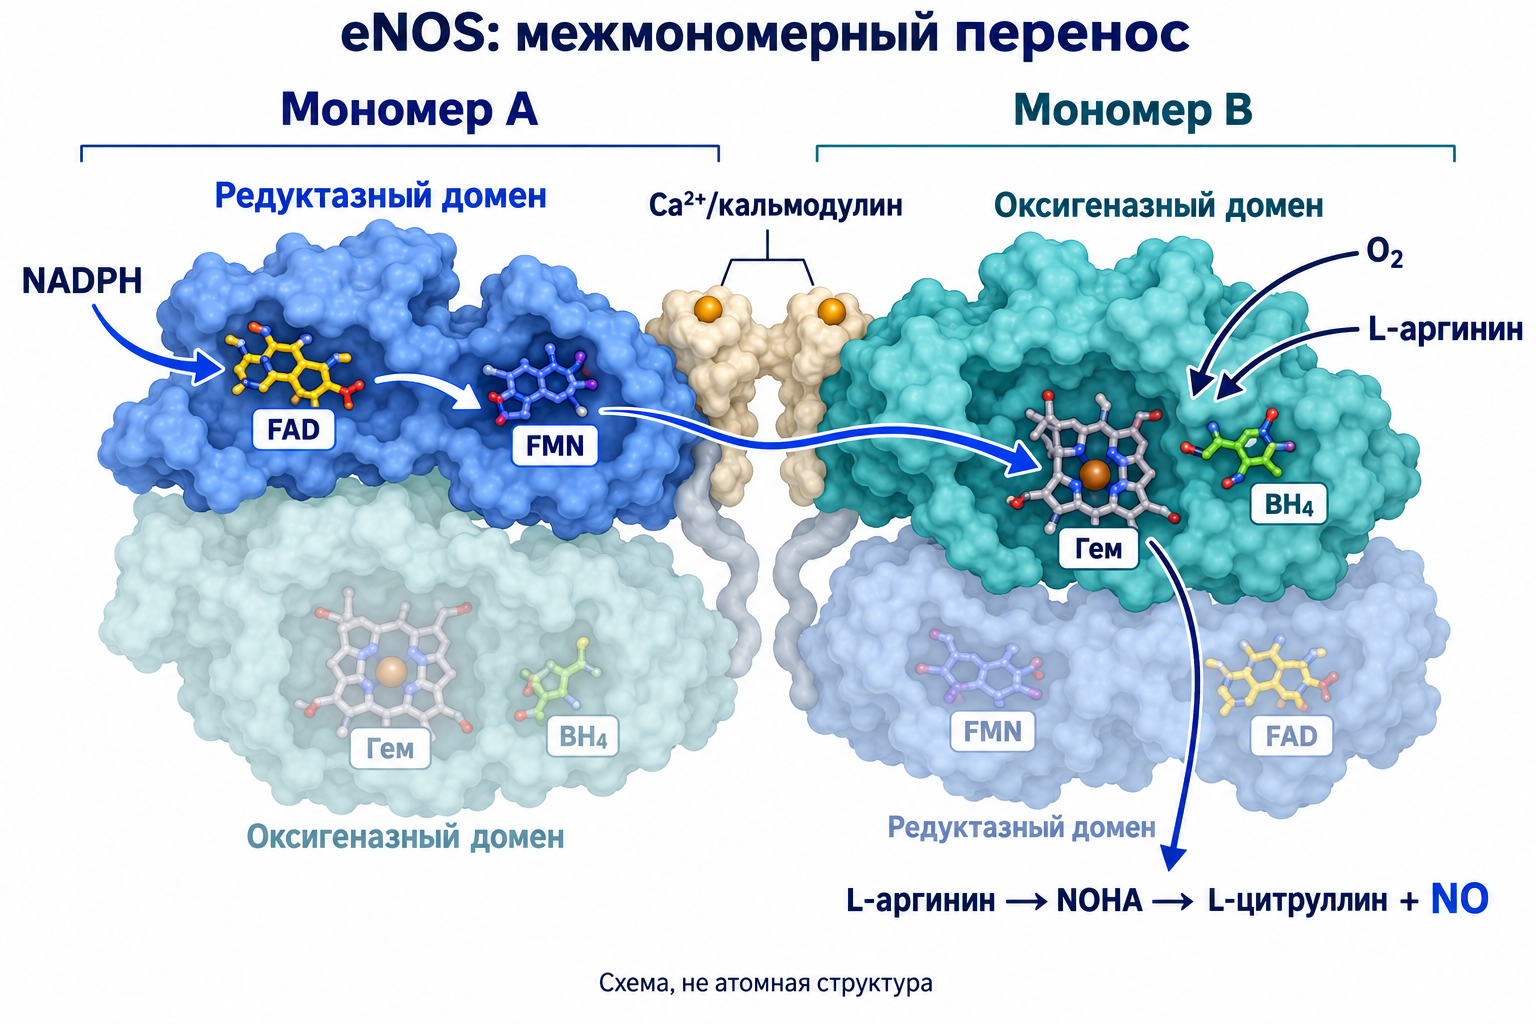
Контакт оксигеназных доменов организует сайты связывания кофактора и каталитическое взаимодействие мономеров. В человеческой последовательности Cys94 и Cys99 каждого партнёра могут координировать один структурный Zn²⁺, формируя цинк-тетратиолатный узел. Цинк не заменяет каталитическое гемовое железо и не является донором электронов для синтеза NO. Его структурная роль связана с геометрией интерфейса, а BH4 и субстрат помогают стабилизировать продуктивное состояние.
Окисление или нитрозилирование тиолов может нарушать узел, изменять связывание кофактора и устойчивость димера. Но «необратимое мгновенное разрушение всего фермента» — чрезмерное обобщение: исход зависит от модификации, среды и возможности восстановления. Димерная организация важна для NO-синтеза, однако сохранённый димер сам по себе не доказывает сопряжение; некоторые формы разобщения не требуют мономеризации.
Ссылки на PDB также требуют точности. 1M9J — человеческий оксигеназный домен eNOS с хлорзоксазоном, 1M9K — с 7-нитроиндазолом. Это структуры лиганд-связанных доменных конструкций, а не полная динамическая модель целого фермента в эндотелиоците. Они полезны для локальной геометрии, но не доказывают постоянную стехиометрию кавеолинового комплекса, обязательный путь дисульфидов или реальную скорость катализа в сосуде.
Ферри-гем Fe³⁺ принимает электрон и переходит в Fe²⁺-состояние, способное связывать O₂. Запись Fe²⁺–O₂ ↔ Fe³⁺–O₂•⁻ описывает электронную структуру связанного интермедиата; это не означает, что любой такой комплекс немедленно выпускает свободный супероксид.
Первая стадия реакции превращает L-аргинин в Nω-гидрокси-L-аргинин (NOHA). Вторая стадия окисляет NOHA с образованием L-цитруллина и NO. Формальная степень окисления азота меняется на пять электронов, но суммарный внешний расход восстановительных эквивалентов соответствует 1,5 NADPH на молекулу NO. Эти два описания не противоречат друг другу: кислород и промежуточные реакции включены в общий баланс.
Суммарную реакцию в распространённой биохимической записи можно представить так:
Здесь Arg и Cit обозначают аргинин и цитруллин; запись протонов зависит от принятой формы кислотно-основных групп, а стехиометрия относится к продуктивному суммарному циклу. При утечке электронов расход NADPH и O₂ на единицу NO возрастает. Реакционные промежуточные формы первой и второй стадий различаются. Гемовые пероксо-, гидропероксо- и оксоферрильные состояния исследуются экспериментально; приписывать обоим этапам единственный безусловно установленный Compound I или жёсткую последовательность всех протонирований было бы слишком категорично.
BH4 располагается рядом с гемом и участвует в организации активного центра, связывании субстрата и одноэлектронном обеспечении кислородной реакции. Он способен переходить в радикальное состояние и восстанавливаться в каталитическом цикле. В зависимости от протонирования это описывают как BH4•⁺ или связанный тригидробиоптериновый радикал. Нельзя отождествлять кратковременный каталитический радикал с накопленным BH2, полностью окисленным биоптерином или доказанным клиническим дефицитом кофактора.
Кофактор помогает направить связанный кислород к продуктивной реакции вместо его преждевременного выхода. Он не гарантирует отсутствие любой утечки, а численные значения сродства к аргинину, расстояния до конкретной группы гема и времени жизни радикала зависят от конструкции и метода. Поэтому фиксированное «падение Km со 100 до 2–5 мкМ» не следует переносить на все состояния человеческого eNOS. BH4 также участвует в ароматических аминокислотных гидроксилазах, но их цикл и система регенерации не идентичны циклу NOS.
Человеческие Ser1177, Thr495, Ser615, Ser633 и Ser114 присутствуют в канонической последовательности. Соответствующая часто используемая бычья нумерация — Ser1179, Thr497, Ser617, Ser635 и Ser116. Число в статье о бычьем конструкте нельзя автоматически объявлять человеческим сайтом.
| Модификация | Типичная механистическая роль | Ограничение |
|---|---|---|
| Фосфорилирование Ser1177 | Akt и другие киназы усиливают электронный поток и облегчают активность при меньшем кальциевом сигнале | Это не полная независимость от CaM и не гарантия NO при дефиците BH4 |
| Фосфорилирование Thr495 | В CaM-связывающем участке обычно ослабляет активацию; PKC — важный регулятор | Эффект зависит от сочетания сайтов и стимулов; не каждый Gq-сигнал выключает eNOS |
| Ser615 и Ser633 | Участки регуляции FMN-части, способствующие активности в ряде моделей; задействованы Akt, PKA, AMPK | Для каждого сайта и киназы нужен отдельный эксперимент, универсальной кратности нет |
| Ser114 | Модификация оксигеназной части с контекстно зависимым эффектом | Её нельзя безоговорочно закрепить за GSK-3β/p38 и единственным ингибиторным исходом |
| SIRT1-зависимое деацетилирование | Регулирует CaM-связывающий участок и продукцию NO | Первичные модельные данные не устанавливают лечебную дозу активатора SIRT1 |
Dimmeler (1999) показала Akt-зависимую регуляцию eNOS; последующие эксперименты уточнили роль разных участков. Увеличение потока электронов полезно лишь при сохранённом сопряжении: стимуляция разобщённого фермента может увеличивать образование активных форм кислорода. Само количество фосфорилированного Ser1177 не является универсальной мерой «эндотелиального здоровья».
В работе Mattagajasingh (2007) мутации исследовали Lys496/Lys506 бычьего eNOS, соответствующие Lys494/Lys504 человеческого белка. Нумерация этих сайтов зависит от вида: в человеческой канонической последовательности P29474 остаток 507 — аланин, поэтому перенос номера без выравнивания последовательностей меняет научный смысл. Более широкий контекст обсуждается в материале о SIRT1 и биодоступности ресвератрола.
N-миристоилирование Gly2 и обратимое S-пальмитоилирование Cys15/Cys26 участвуют в мембранной локализации eNOS. Фермент обнаруживается в плазматической мембране, кавеолах, аппарате Гольджи и других связанных пулах. Компартмент влияет на доступность кальция, субстрата и сигнальных партнёров; весь фермент не перемещается по одинаковому обязательному маршруту после каждого стимула.
Кавеолин-1 (Cav-1) обычно ограничивает активность eNOS, тогда как кальмодулин и Hsp90 способствуют продуктивным взаимодействиям. Hsp90 может координировать фермент и киназы, включая Akt. Отсюда не следует неизменный комплекс Cav-1:eNOS 1:1, полное вытеснение Cav-1 при любом потоке крови или обязательный выход каждого димера на кортикальный актин. Кавеолин влияет и на архитектуру мембраны, а его дефицит способен иметь эффекты, которые не сводятся к простому снятию «предохранителя» NO.
Путь синтеза BH4 de novo начинается с GTP-циклогидролазы I (GTPCH-I, ген GCH1), превращающей GTP в дигидронеоптеринтрифосфат. Следующие стадии включают 6-пирувоилтетрагидроптеринсинтазу (PTPS, PTS) и сепиаптеринредуктазу (SPR), а также вспомогательные редуктазы в определённых тканях. Экспрессия ферментов, обратная связь и доступность восстановительных эквивалентов влияют на конечный пул BH4; GCH1 — важное, но не единственное регулирующее звено.
Нужно различать регенерацию хиноидного дигидроптерина в циклах гидроксилаз и восстановление 7,8-BH2 через дигидрофолатредуктазу (DHFR). DHPR/QDPR и DHFR — разные ферменты. Сепиаптериновые пути также могут проходить через BH2 и требовать DHFR. Crabtree (2009) экспериментально показал важность DHFR-зависимого рециклирования для сопряжения eNOS; эффективность восстановления различается между типами клеток.
Окисление BH4 не всегда происходит через единственную последовательность «BH4 → qBH2 → 7,8-BH2 → биоптерин». Радикальные реакции имеют несколько продуктов и путей. Пероксинитрит способен повреждать пул кофактора; другие окислители, метаболический стресс и изменения синтеза также участвуют. Каталитический BH4-радикал обычно регенерируется в цикле NOS, тогда как патологическое окисление может создавать накопленный BH2. Представлять DHFR-дефицит как обязательный, необратимый исход любого диабета или гипертензии неправильно.
BH2 может занимать птеридиновый сайт, не обеспечивая нужного электронного вклада в кислородную реакцию. Поэтому отношение BH4/BH2 часто информативнее, чем один общий показатель биоптеринов. Но абсолютная доступность BH4 относительно количества eNOS тоже имеет значение: высокое отношение не компенсирует любое истощение обоих веществ. Полностью окисленный биоптерин не следует автоматически считать функционально идентичным конкурентом BH2.
Сродство BH4 и BH2, условия конкуренции и вклад разных пулов зависят от модели. Фиксированные «норма 4:1–8:1», «патология 1:2» или «порог 1,5» не являются общепринятой диагностикой разобщения человеческого сосудистого эндотелия. Также нет основания называть всякий BH2-связанный димер отдельным неизменным «псевдодимером». Можно говорить о снижении доли продуктивно сопряжённых молекул и изменении соотношения образования NO и супероксида.
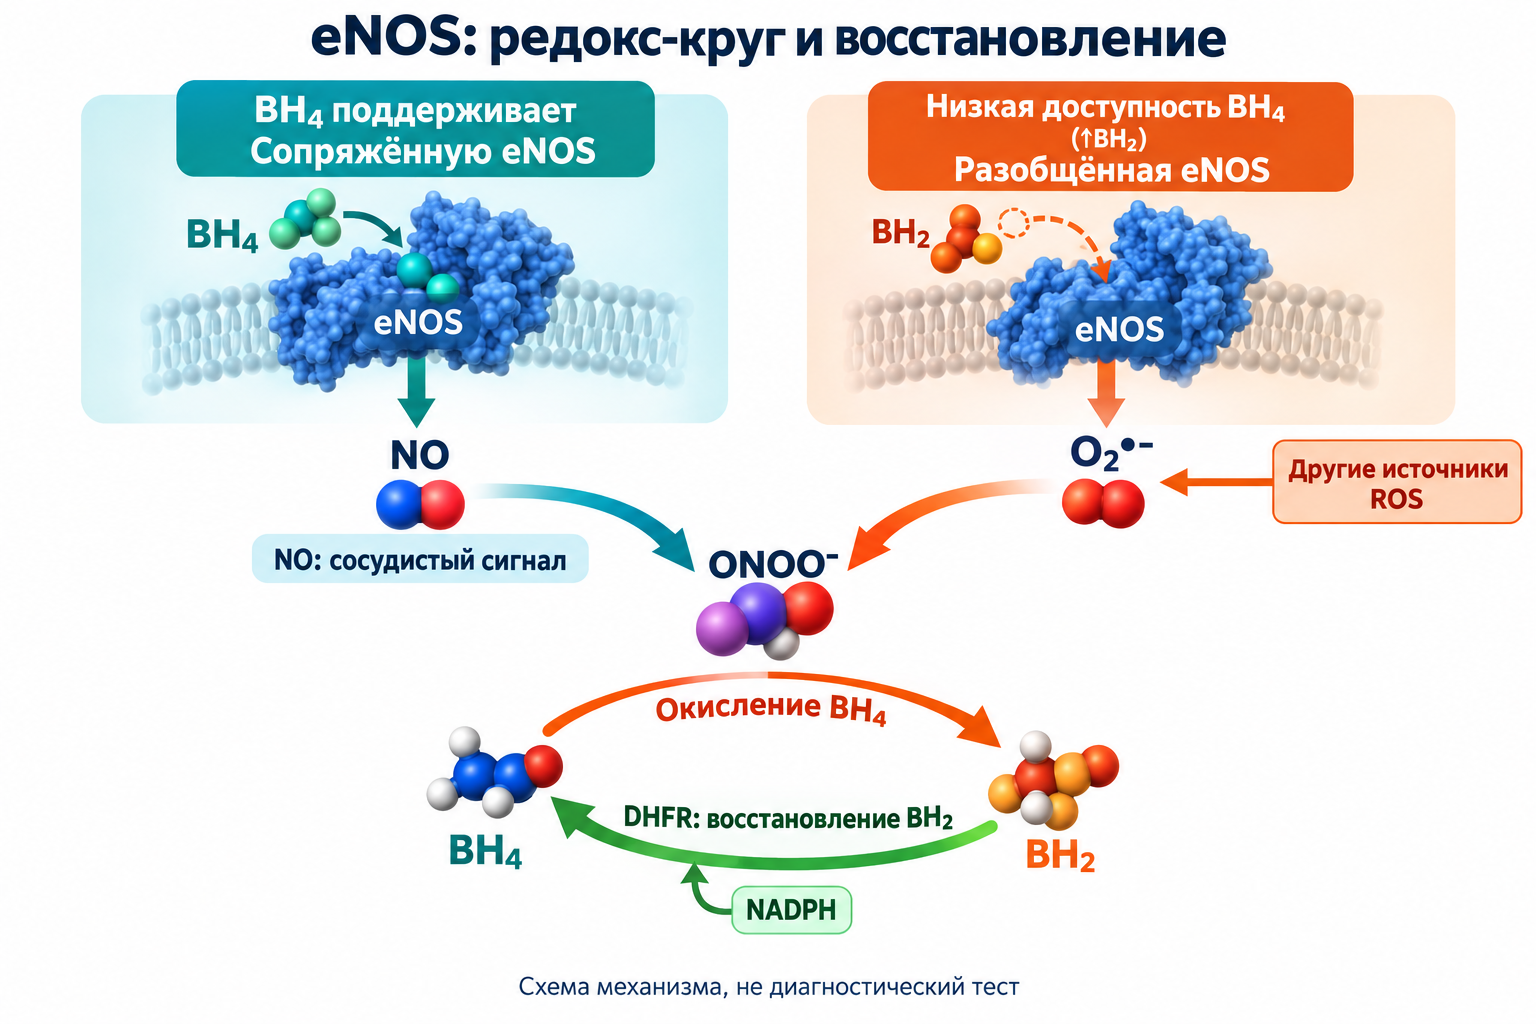
При недостаточной кофакторной или субстратной поддержке часть восстановленного кислорода может выйти из гемового комплекса как супероксид:
Эта упрощённая запись иллюстрирует один путь кислородной утечки. Она не описывает всю кинетику eNOS, не доказывает блокировку каждого второго электрона и не устанавливает универсальный kcat 15–25 с⁻¹. Другой источник утечки расположен в редуктазной части при определённых редокс-модификациях. Где образуются активные формы кислорода, принципиально для их действия: заряженный O₂•⁻, его продукты и свободно диффундирующий NO имеют разные свойства транспорта. Нельзя изображать весь супероксид как свободно проходящий через любые мембраны и непосредственно выбрасываемый в интиму.
При совместном присутствии NO и супероксида возможна быстрая реакция:
Её константа порядка 10⁹–10¹⁰ M⁻¹с⁻¹ близка к диффузионно ограниченной, а не «превышает диффузионный предел». Сравнение только бимолекулярных констант с SOD не доказывает, что никакая концентрация SOD не способна защитить ткань. Конкуренция зависит от локальных концентраций, компартмента и времени совместного появления реагентов. Для одинакового супероксидного пула скорости можно приближённо сравнить как:
В этой модели k — соответствующие бимолекулярные константы, квадратные скобки — локальные молярные концентрации; она не учитывает все дополнительные реакции и перенос. Супероксиддисмутазы SOD1, SOD2 и SOD3 действуют в разных средах. Материал о SOD2 помогает отличить митохондриальный антиоксидантный контроль от внеклеточной защиты сосудистой стенки.
ONOO⁻/ONOOH могут окислять кофакторы, тиолы, липиды и гемовые системы. Реакции с CO₂/бикарбонатом, образование вторичных радикалов и локальная среда влияют на нитрирование. Нитрирование Tyr34 SOD2 связано со снижением активности в экспериментальных моделях; это не означает полную инактивацию всех митохондрий при любом обнаружении нитротирозина. Окисление гема sGC и потеря гема могут снижать чувствительность к NO, но это не означает полной нечувствительности всей сосудистой стенки к любому донору NO.
Положительная обратная связь «больше окислителей → меньше продуктивного BH4 → больше кислородной утечки» биохимически правдоподобна и продемонстрирована в моделях. В живом сосуде одновременно работают восстановление, антиоксидантная защита, разные источники NO и несколько источников ROS. NOX1/NOX2, ксантиноксидаза, митохондрии, воспалительные клетки и разобщённые NOS могут давать разные вклады. NOX4 часто преимущественно связан с H₂O₂ и имеет контекстно зависимые, в том числе защитные эффекты; его нельзя включать в универсальную схему идентичной NOX2 сборки и исключительно вредной генерации супероксида.
Chen (2010) показал, что S-глутатионирование eNOS меняет соотношение NO и супероксида и связано с нарушением сосудистой релаксации в экспериментальной системе. Человеческие Cys689 и Cys908 расположены в редуктазной области; соответствующая бычья нумерация может отличаться. Образование смешанного дисульфида белок–S–S–глутатион зависит от GSSG, промежуточных окисленных тиолов и локальной химии. Универсальная граница GSH/GSSG «50:1 → 10:1» не описывает все клеточные компартменты.
Эта модификация способна нарушать электронный поток и усиливать редуктазную кислородную утечку даже при наличии BH4 и аргинина. Важное отличие: такой супероксид не обязательно полностью подавляется удалением кальция или ингибитором гемового активного центра. Поэтому один L-NAME-тест не обнаруживает все формы разобщения.
Из этого не следует, что присоединение глутатиона неизбежно разрывает Zn(Cys)₄-узел и димер. Окисление интерфейса и модификация редуктазной области — связанные, но различимые процессы. Деглутатионирование через глутаредоксиновые и тиоредоксиновые системы исследуется как механизм восстановления; его нельзя выдавать за готовую клиническую процедуру. Мономерная eNOS имеет нарушения NO-синтеза и может давать кислородную утечку, но не обязательно «функционирует исключительно как одинаковая NADPH-оксидаза» при всех условиях.
Внутриклеточная концентрация аргинина часто превышает измеренный Km NOS, однако общий клеточный пул не равен доступности субстрата в конкретном сигнальном комплексе. Транспорт CAT-1, метаболическое каналирование, регенерация аргинина из цитруллина через ASS1/ASL и присутствие ингибиторов помогают объяснять «аргининовый парадокс». Он не означает, что введение аргинина всегда восстанавливает человеческий эндотелий.
Аргиназа I обычно цитозольная, аргиназа II — преимущественно митохондриальная. Обе гидролизуют аргинин до орнитина и мочевины. При повышении активности они могут конкурировать с NOS за функционально доступный субстрат, а орнитин поддерживает синтез полиаминов и пролина. Более низкое сродство аргиназы не исключает конкуренцию при большой каталитической мощности и разделении пулов. Но неизменные тысячекратные отношения Vmax и «выкачивание только кавеолярного аргинина» не установлены как универсальные показатели сосудов человека.
ADMA образуется после протеолиза белков с асимметрично метилированными аргининовыми остатками, созданными PRMT первого типа. Он конкурентно ограничивает NOS-зависимый синтез NO. Ингибирование NO-синтеза и разобщение не тождественны: наличие ADMA не доказывает одинаковую супероксидную утечку в каждом состоянии фермента.
DDAH1 превращает ADMA в цитруллин и диметиламин; почечное выведение и альтернативный метаболизм, включая AGXT2, тоже влияют на уровень. Редокс-состояние DDAH1 способно менять активность. DDAH2 нельзя автоматически считать второй аналогичной ADMA-гидролазой: консорциум Ragavan (2023) не обнаружил такого каталитического метаболизма в исследованных человеческих белковых/клеточных и мышиных системах. Функции DDAH2 выходят за пределы этого гидролиза. Число Cys274 для активного центра из определённого конструкта также нельзя без проверки переносить на человеческую последовательность.
Эндотелиальный NO достигает соседних гладкомышечных клеток и связывается с восстановленным гемом растворимой гуанилатциклазы (sGC). Перестройка координации железа с гистидином β-субъединицы активирует превращение GTP в cGMP с высвобождением пирофосфата. cGMP действует через PKG и другие эффекторные системы, а фосфодиэстеразы ограничивают длительность сигнала.
PKG уменьшает кальциевый сигнал и чувствительность сократительного аппарата к кальцию. Она влияет на BKCa-каналы и мембранный потенциал, системы захвата Ca²⁺, IRAG/IP₃-рецепторные комплексы и регуляцию миозиновой фосфатазы. Фосфорилирование MYPT1 и регуляторов RhoA/ROCK помогает сдвигать баланс относительно MLCK-зависимого фосфорилирования лёгких цепей миозина. Направление эффекта зависит от участка и ткани; единая схема «фосфорилирование каждого IP₃R всегда активирует SERCA2a» слишком груба.
Падение доступности NO способно усиливать тонус, но локальная релаксация включает простаноиды, эндотелий-зависимую гиперполяризацию и другие механизмы. Окисление sGC — отдельная возможная причина нарушенного ответа, а не доказательство разобщения eNOS по одному функциональному тесту.
Физиологическая NO-сигнализация ограничивает тромбоцитарную активацию и адгезию лейкоцитов, регулирует барьер и воспалительные программы. S-нитрозилирование регуляторов NF-κB, включая p50 и IKKβ, демонстрирует одну из возможных молекулярных связей. NO не является безусловно противовоспалительным при любой концентрации и источнике: высокие потоки iNOS и реактивные продукты азота могут давать иной результат.
Цитокины и редокс-сигналы способны активировать IKK, деградацию IκB и ядерные программы NF-κB. Экспрессия VCAM-1, ICAM-1, селектинов и CCL2/MCP-1 поддерживает рекрутирование моноцитов. Селектиновые взаимодействия способствуют роллингу; хемокины через CCR2 и другие рецепторы активируют интегрины. VLA-4 взаимодействует с VCAM-1, LFA-1 — с ICAM-1, после чего возможна трансэндотелиальная миграция. Это не обязательная линейная последовательность, запускаемая одной только eNOS.
В интиме удержанные ApoB-содержащие липопротеины могут агрегировать и модифицироваться; окисление — один из путей. Через CD36, SR-A и другие механизмы макрофаги накапливают липидные капли и приобретают пенистый фенотип. Представление всех клеток как одинаковых M1-макрофагов, а захвата липидов как исключительно «нерегулируемого фагоцитоза oxLDL» не отражает разнообразия ткани. Сосудистые гладкомышечные клетки тоже могут становиться липид-накапливающими. Повреждённый эндотелий не является обязательным условием для любого входа и удержания липопротеинов.
Сократительный фенотип связан с ACTA2, MYH11, CNN1 и TAGLN, а комплекс SRF–миокардин поддерживает соответствующую транскрипцию. PDGF, воспаление, механические условия, липидная нагрузка и другие стимулы могут менять программу VSMC. KLF4 участвует в репрессии ряда сократительных генов и изменениях хроматина, но сам не является универсальной ферментативной деметилазой.
Изменённые VSMC могут мигрировать, пролиферировать, выделять коллагены, фибронектин, протеогликаны и металлопротеиназы. В некоторых условиях появляются остеохондрогенные программы RUNX2 и щелочной фосфатазы, связанные с кальцификацией. Это спектр состояний, а не один неизбежный «синтетический» конечный фенотип. Часть VSMC формирует защитную фиброзную покрышку бляшки; все изменения нельзя описывать только как разрушительные.
Продолжительный окислительный/нитрозативный стресс может повреждать ядерную и митохондриальную ДНК, активировать PARP1, расходовать NAD⁺ и влиять на энергетический баланс. Чрезмерная PARP1-активация участвует не только в обычном каспазном апоптозе, но и в иных формах гибели, включая партанатоз. Она не означает автоматическое высвобождение цитохрома c и каспазы-3 в каждой клетке.
Стресс, теломерная дисфункция и другие повреждения способны поддерживать остановку клеточного цикла и SASP: IL-6, IL-8, PAI-1 и другие сигналы меняют микроокружение. Связи NO, теломеразы и сохранения клеточного состояния исследованы в моделях, но eNOS не гарантирует отсутствия возрастного укорочения теломер, а клеточная сенесценция не сводится к одному маршруту.
Термин «эндотелиальные прогениторные клетки» исторически объединял неоднородные популяции. CD34⁺CD133⁺VEGFR2⁺-клетки могут быть преимущественно гемопоэтическими проангиогенными клетками; их нельзя автоматически отождествлять с истинными эндотелиальными колониеобразующими клетками. NO-зависимая мобилизация и паракринная поддержка восстановления имеют экспериментальное основание, но универсальное падение интеграции EPC на 70–80% у людей с «системным разобщением» не установлено.
Крупные эластические артерии сглаживают пульсацию выброса, а резистивные сосуды распределяют поток. Жёсткость зависит не только от внеклеточного матрикса, но и от давления растяжения, геометрии, гладкомышечного тонуса, клеточного цитоскелета и взаимодействий с матриксом. Разобщение eNOS может участвовать в этих изменениях через NO/ROS, однако возраст, гипертензия, почечная болезнь, кальцификация и другие процессы имеют самостоятельное значение.
Эластические волокна формируются преимущественно в ранние периоды жизни, а их обновление во взрослой аорте ограничено. Повреждение долго живущего эластина поэтому трудно компенсировать. Воспаление и редокс-среда влияют на экспрессию и активацию MMP-2, MMP-9, MMP-12 и других протеаз. Модификация продомена по механизму «цистеинового переключателя» может менять активность металлопротеиназ, но окислители способны и активировать, и инактивировать их в зависимости от условий. Фрагментация эластина и перераспределение нагрузки на коллаген — существенная связь с механикой стенки, а не доказательство обязательного MMP-каскада исключительно от eNOS.
VSMC и адвентициальные фибробласты под влиянием TGF-β и механических сигналов регулируют синтез коллагенов I/III, фибронектина и других компонентов. Медь-зависимая лизилоксидаза (LOX) окислительно дезаминирует лизиновые/гидроксилизиновые группы, обеспечивая ферментативные сшивки. LOX не то же самое, что липопротеиновый рецептор LOX-1. LOX физиологически участвует и в созревании эластина; описывать все её функции как патологическое уплотнение неверно.
Неферментативные реакции сахаров и дикарбонилов создают AGEs и могут менять свойства матрикса. Глюкозепан и пентозидин относятся к сшивающим продуктам. Nε-карбоксиметиллизин (CML) — важный AGE-аддукт и маркер, но не межмолекулярная сшивка сам по себе. RAGE-сигнализация дополнительно связывает некоторые AGE-воздействия с воспалением и окислительным стрессом. Не все AGEs имеют одинаковое сродство к RAGE или одинаковую механическую роль.
Модули отдельных коллагеновых волокон и эластина, измеренные различными методами, не равны эффективному модулю многослойной живой артерии. Нельзя подставлять произвольные 100–1000 МПа из материала коллагена непосредственно в клиническую формулу скорости волны. Нелинейное подключение волокон при растяжении и давление измерения существенно влияют на результат.
Упругий резервуар аорты принимает часть систолического объёма и возвращает упругую энергию в диастолу, поддерживая поток. Доля зависит от гемодинамики, поэтому неизменные 50% ударного объёма — иллюстрация, а не универсальная физиологическая константа. Скорость распространения волны давления не равна скорости движения крови.
Для тонкостенной упругой трубки формула Моэнса–Кортевега даёт приближение:
Здесь c — скорость волны, Einc — инкрементный модуль стенки при данном состоянии растяжения, h — её толщина, R — радиус, ρ — плотность жидкости. Формула предполагает идеализированную геометрию и механические условия. Поправки на ограничение движения, толщину, вязкоупругость и неоднородность изменяют модель.
Связь Брамвелла–Хилла выражает скорость через объёмную растяжимость:
V — объём участка, P — давление; dV/dP — compliance, то есть абсолютная податливость, а DV — относительная растяжимость. Эти величины нельзя называть одним и тем же без единиц. Модели описывают близкую физическую связь, но не являются точным тождеством для любой человеческой аорты.
Более жёсткая стенка обычно проводит волну быстрее. Отражения возникают в распределённом сосудистом дереве из-за изменений импеданса, геометрии и свойств стенок; единой точки отражения «в артериолах» нет. Быстрые волны могут усиливать позднесистолическую нагрузку, однако центральное давление зависит также от прямой волны, выброса сердца, роста, частоты и распределения отражений. Молодая отражённая волна не обязана точно совпадать с закрытием клапана, а индекс аугментации не является чистой мерой жёсткости.
Пульсовое давление — разность систолического и диастолического давления. Его расширение при жёсткой аорте может сочетаться с изолированной систолической гипертензией, повышенной постнагрузкой, гипертрофией и диастолической дисфункцией левого желудочка. Падение диастолического давления способно ухудшать коронарную перфузию при определённых условиях. Но коронарный кровоток не происходит «исключительно в диастолу» для обеих артерий: диастолическое преобладание особенно важно для левого желудочка, а распределение неоднородно.
Увеличенная пульсация может передаваться в низкорезистивные органные бассейны. Почечные клубочки, мелкие мозговые сосуды и сетчатка чувствительны к сочетанию давления, пульсации и нарушений авторегуляции. Связи с альбуминурией, снижением функции почек, поражением белого вещества, лакунами и ретинальными изменениями важны, но это не неизбежный «гидроудар» при заданном eNOS-статусе. Барьер, сосудистая авторегуляция и сопутствующие заболевания влияют на исход.
Flow-mediated dilation (FMD) оценивает изменение диаметра плечевой артерии после усиления потока при реактивной гиперемии. Часто используют пятиминутную окклюзию предплечья и высокочастотное УЗИ с отслеживанием диаметра. Это исследовательская процедура со стандартизацией подготовки, манжеты, анализа потока и поиска пика; описание не является инструкцией для самостоятельной провокации ишемии.
Dbase — исходный диаметр, Dpeak — максимальный зарегистрированный диаметр в определённом протоколом окне. Например, увеличение с 4,00 до 4,24 мм даёт 6%. Точка максимума не обязана всегда приходиться на 60–90 секунд; поиск фиксированной единственной точки способен сместить оценку. Исходный диаметр, величина shear-стимула, питание, курение, лекарства, время суток и операторская методика имеют значение.
Консенсус Thijssen (2019) подчёркивает стандартизацию. FMD отражает эндотелий-зависимую функцию с важным NO-компонентом, но не измеряет базальный синтез NO или конкретную долю разобщённого eNOS напрямую. Единый порог 6,5–7% не верифицирует молекулярное разобщение во всех популяциях. Тест ответа на NO-донор может дополнительно оценивать гладкомышечную реактивность, однако его интерпретация и безопасность требуют клинического протокола; универсальная «норма NMD >15–20%» здесь не устанавливается.
Метаанализ Inaba (2010) связывал более высокий FMD с меньшим риском событий в наблюдательных когортах. Ассоциация на процентный пункт не превращается в причинное обещание снижения риска после увеличения FMD добавкой. Метаанализ опубликован в International Journal of Cardiovascular Imaging.
Периферическая артериальная тонометрия регистрирует изменение пульсового сигнала в пальцах после окклюзии. RHI использует отношение после/до на тестовой стороне с нормированием на контрольную и дополнительные особенности алгоритма прибора. Она уменьшает часть операторских проблем, но не устраняет влияние температуры, симпатического тонуса, исходного сигнала и качества процедуры. Пальцевая микрососудистая реактивность и FMD крупной артерии не взаимозаменяемы и не одинаково зависят от NO.
Числа вроде RHI 1,67 или 2,10 встречаются в приборных/исследовательских классификациях, но не доказывают прямого eNOS-разобщения и не задают универсальное лечение. Индекс аугментации для соответствующей волны давления записывают:
AP — давление аугментации, PP — пульсовое давление, P1/P2 — определённые выбранным алгоритмом точки волны. Эта запись не позволяет автоматически приравнять проприетарный пальцевой индекс к центральному аортальному AIx. Нормирование к 75 ударам/мин снижает одно влияние, но возраст, рост, пол, периферический тонус и форма выброса остаются. Универсальные половые границы AIx для диагностики разобщения не подтверждены.
cfPWV — широко используемый показатель региональной жёсткости преимущественно аортального пути. Измеряют задержку между началами волн и расстояние согласно валидированному методу:
Deff — эффективная длина в метрах, Δt — время в секундах; итог имеет единицы м/с. При Deff = 0,60 м и Δt = 0,060 с получается 10 м/с. Коэффициент 0,8 от прямого расстояния применяется в определённых стандартизированных методах, а не как единственная поправка для всех приборов и анатомии.
cfPWV зависит от возраста и текущего давления. Значение около 10 м/с используется в ряде клинических классификаций повышенной жёсткости/субклинического поражения, при соответствующем методе измерения. Это не порог биохимической диагностики eNOS и не гарантированное удвоение риска у любого человека независимо от остальных факторов. Mitchell и Ben-Shlomo показали прогностическую связь в когортах и объединённых данных; добавочная прогностическая информация отличается от доказательства пользы лечения ради одного числа.
BH4 легко окисляется при подготовке образца. Для аналитического исследования необходимы валидированные забор, стабилизация, хранение и метод разделения/детекции. ВЭЖХ с электрохимическим или флуоресцентным определением и LC-MS/MS решают разные аналитические задачи; конкретный стабилизатор и температура должны соответствовать методике лаборатории, а не универсальному рецепту из статьи.
В работе Antoniades (2007) плазменные и сосудистые биоптерины имели различающиеся связи с эндотелиальной функцией и воспалением. Плазма не является прямым окном в птеридиновый карман каждого сосудистого eNOS. Отношения можно определить как:
Это безразмерные аналитические индексы разных составов знаменателя, а не взаимозаменяемые валидированные клинические «индексы сопряжения». Низкое отношение может поддерживать гипотезу нарушения редокс-пула, но не доказывает источник ROS, ферментную локализацию или требуемую дозу лечения.
3-Нитротирозин отражает нитрирование, но образуется не только через пероксинитрит: системы миелопероксидаза/нитрит тоже вносят вклад. Свободный и белково-связанный аналиты, LC-MS и ELISA не имеют одного универсального референсного диапазона. MDA и F₂-изопростаны характеризуют липидное окисление, но зависят от образца, метаболизма и метода; они не специфичны для eNOS. ADMA и Arg/ADMA относятся к субстратной/ингибиторной среде и почечному метаболизму, а не однозначной диагностике разобщения.
| Показатель | Что преимущественно отражает | Почему не доказывает разобщение eNOS сам по себе |
|---|---|---|
| FMD | Реактивность крупной артерии к потоку | Зависит от стимула, диаметра, нескольких путей релаксации |
| RHI | Пальцевая микрососудистая реактивность | Приборный алгоритм, симпатический тонус, ограниченная специфичность |
| cfPWV | Скорость аортальной волны/региональная жёсткость | Возраст, давление, геометрия, матрикс и мышечный тонус |
| BH4/BH2 | Редокс-состав выбранного биоптеринового пула | Плазменный пул не равен внутрисосудистому ферментному сайту |
| ADMA и Arg/ADMA | Баланс ингибитора/субстрата и метаболизм | Ингибирование не тождественно кислородной утечке |
| 3-Нитротирозин | Нитрирующая химия | Несколько путей образования, разные аналитические формы |
| MDA/F₂-изопростаны | Липидное окисление | Не определяют конкретный фермент-источник |
| sVCAM-1 | Воспалительную/эндотелиальную активацию | Зависит от нескольких тканей и сигналов |
| Эндотелин-1 | Один из вазоактивных контуров | Плазменное содержание не равно локальному тонусу или eNOS-статусу |
В механистических исследованиях сочетание измерений NO/цитруллина, ROS с подходящей химической специфичностью, птеридинов, модификаций белка и реакции на направленные вмешательства убедительнее одного маркера. Низкотемпературный SDS-анализ димер/мономер также имеет методические ограничения. Флуоресцентный сигнал DHE без разделения продуктов не является специфическим количественным измерением супероксида, а L-NAME-чувствительность не охватывает любую редуктазную утечку. Такие инструменты требуют контролей и не составляют обычную клиническую «панель прямого разобщения».
Сапроптерин — фармакологическая форма BH4 с зарегистрированными показаниями, прежде всего при BH4-чувствительной фенилкетонурии. Наличие препарата не означает его одобрения для лечения любого высокого cfPWV или низкого FMD. Ранние исследования Stroes и Heitzer показывали улучшение сосудистого ответа при локальном BH4-введении в определённых условиях. Локальный сосудистый эксперимент и длительный пероральный курс — разные вмешательства; методы оценки кровотока и FMD нельзя считать взаимозаменяемыми.
Cunnington (2012) в рандомизированном исследовании пациентов с установленной коронарной болезнью обнаружил рост общего биоптеринового пула после перорального BH4 без ожидаемого улучшения сосудистой редокс-среды и эндотелиальной функции. Окисление и распределение вещества помогали объяснить ограниченную эффективность. Из этого не следует универсальная биодоступность менее 8–10% для всех препаратов, но следует важность BH2, ткани-мишени и реального функционального результата.
Antoniades (2006) исследовал 5-метилтетрагидрофолат (5-MTHF) на человеческих сосудах и при введении пациентам, проходившим коронарное шунтирование. Были получены данные об уменьшении супероксидного сигнала, улучшении BH4-доступности и сосудистой функции. Это не подтверждает универсальную схему длительного перорального 5-MTHF 5–10 мг/сут для всех пациентов с ИБС. 5-MTHF не следует объявлять доказанным заменителем BH4 в птеридиновом кармане, а прямое связывание/защита DHFR — не универсальный установленный механизм каждого фолатного эффекта.
Фолиевая кислота, её восстановленные производные, DHFR и метаболизм одноуглеродных групп связаны, но не взаимозаменяемы. Коррекция недостаточности, гомоцистеин, изменение сосудистого суррогата и предотвращение событий требуют разных доказательств. Ни эта химия, ни краткосрочная реакция изолированного сосуда не задают профилактическую дозу метилфолата по плазменному BH4/BH2.
Пероральный аргинин подвергается кишечному и печёночному метаболизму, а транспорт и активность аргиназ ограничивают доступность. Постоянная потеря 60–70% именно печенью не является универсальным фармакокинетическим параметром. Цитруллин не субстрат аргиназы и в значительной степени избегает такого пресистемного расходования; почечная конверсия через ASS1/ASL повышает аргинин. Внутриклеточный цитруллин–аргининовый цикл также участвует в обеспечении NOS.
Schwedhelm (2008) показал особенности фармакокинетики пероральных аргинина/цитруллина. Рост плазменного аргинина не гарантирует уменьшение кислородной утечки, стабильное снижение cfPWV или предотвращение инфаркта. Цитруллин нельзя назвать «биохимически безупречной альтернативой» при любом диагнозе; прямое клинически значимое аллостерическое подавление сосудистой аргиназы после обычного приёма не установлено этой фармакокинетической работой.
В недельном перекрёстном исследовании Schwedhelm (2008) у 20 здоровых участников ни один режим не улучшил FMD относительно исходного уровня: фармакокинетический эффект и улучшение функции сосудов — разные конечные точки.
Особенно важен VINTAGE MI (Schulman, 2006): 153 пациента после первого STEMI получали аргинин или плацебо на фоне стандартной терапии. Улучшения жёсткости или фракции выброса не получили; в аргининовой группе умерли шесть участников против ни одного в группе плацебо, и набор остановили из-за безопасности. Это не «крупное доказательство вреда любого аргинина для каждого человека», но серьёзное основание не рекомендовать его после острого инфаркта и не выводить безопасность из принадлежности вещества к нормальному метаболизму.
Аскорбат способен поддерживать птеридиновую редокс-химию, включая восстановление радикальных промежуточных форм. α-Токоферол прерывает цепные реакции липидного окисления, а взаимодействие антиоксидантов на границе водной и липидной фаз имеет химический смысл. При этом величины редокс-потенциалов зависят от пары, pH и условий; нельзя одной стандартной цифрой доказать лечебную синергию в сосуде человека.
В сосудистых экспериментах витамин C мог улучшать функциональный ответ. Это не показывает, что любой высокодозный курс C/E действует исключительно через рекуплинг eNOS или предотвращает сердечно-сосудистые события. Внутривенная концентрация, пищевое поступление и пероральный препарат отличаются; добавки не воспроизводят автоматически условия клетки или инфузии. Эти механизмы не обосновывают универсальную профилактическую схему C/E.
Ресвератрол в клеточных и животных системах связан с SIRT1, AMPK, FOXO и антиоксидантными программами. Он не является одинаково специфичным прямым активатором SIRT1 во всех тестах. EGCG исследуют в PI3K/Akt/eNOS-сигналах, рецепторных взаимодействиях и редокс-регуляции, а антоцианы/проантоцианидины — в экспрессии и воспалительных программах. Утверждения о едином маршруте 67LR–Fyn, универсальной стабилизации NOS3 3′-UTR или обязательном подавлении miR-155 требуют проверки для конкретного вещества и модели.
Положительный молекулярный эффект не устанавливает биодоступность, длительную эффективность и безопасность сочетания концентрированных экстрактов. Поэтому дозовые комплексы ресвератрола/птеростильбена, OPC и EGCG не предлагаются как проверенный алгоритм «рекуплинга». Различие между пищевой моделью и фармакологическими концентрациями принципиально.
Статины уменьшают поток мевалонатного пути и образование изопреноидов, необходимых для пренилирования малых GTPаз. RhoA/ROCK, стабильность NOS3-транскрипта, Akt и биоптериновый метаболизм связаны с экспериментальными плейотропными эффектами. Их нельзя считать единственной причиной клинического результата: снижение ApoB-содержащих липопротеинов имеет самостоятельное доказательное значение. Универсальная кратность стабилизации мРНК или прямое снятие любого Thr495-фосфорилирования не обязательны.
Ингибиторы АПФ и блокаторы AT1-рецепторов снижают ангиотензиновые сигналы и могут ограничивать NOX-зависимый стресс; ингибиторы АПФ также меняют метаболизм брадикинина. Ангиотензин II — важный, но не единственный источник окислительных сигналов. Назначение определяется клинической ситуацией, а не положительной стрелкой в eNOS-схеме или универсальным выбором телмисартана по PPARγ.
Для ингибиторов SGLT2 и агонистов GLP-1R существуют клинические исходы в определённых популяциях. Влияние на массу тела, гемодинамику, почки, обмен и воспаление может взаимодействовать с эндотелиальной функцией. Однако NHE1, AMPK/SIRT1 и прямое эндотелиальное GLP-1R-сигналирование — исследуемые, контекстно зависимые объяснения; распределение функциональных GLP-1R в сосудах неоднородно. Нельзя объявлять всю пользу доказанным прямым рекуплингом eNOS.
Интенсивность терапии статинами определяется конкретным препаратом и дозой. Здесь лекарственные дозы не превращаются в редакционный алгоритм назначения. Выбор препарата требует его показаний, сопутствующих состояний и клинического наблюдения.
| Подход | Что поддерживает механизм | Главный предел переноса |
|---|---|---|
| Локальный BH4 | В отдельных сосудистых опытах улучшается NO-зависимый ответ | Не равен длительной пероральной терапии или исходам |
| Пероральный BH4 | Увеличение биоптеринов, зависимость от окисления | В коронарном РКИ не было ожидаемого функционального эффекта |
| 5-MTHF | Человеческая сосудистая ткань, BH4/ROS и функция | Не доказанный универсальный кофактор-заменитель и дозовый протокол |
| Аргинин/цитруллин | Субстратный обмен и фармакокинетика | Суррогаты неоднородны; VINTAGE MI требует особой осторожности после инфаркта |
| C/E и полифенолы | Редокс-химия, модельные сигнальные пути | Концентрация и суррогат не устанавливают клиническую синергию |
| Статины, РАС-блокада | Клинические показания плюс механистические данные | eNOS не единственный медиатор доказанной пользы |
| SGLT2/GLP-1R препараты | Клинические результаты в соответствующих популяциях | Прямой eNOS-механизм нельзя назначать всему классу и любой ткани |
| Физическая активность | Гемодинамические, метаболические и функциональные адаптации | Нет универсальной дозы shear-стресса и гарантированной величины FMD/cfPWV |
Сдвиговое напряжение передаётся через гликокаликс, мембранные структуры, интегрины, PECAM-1/VE-кадгерин/VEGFR-комплексы, ионные каналы и цитоскелет. PI3K/Akt, KLF2/KLF4, SIRT1 и другие программы могут поддерживать NOS3, барьер и антиадгезивный фенотип при устойчивом направленном потоке. Осциллирующий поток и геометрия бифуркаций дают иной сигнал. Гликокаликс и межклеточный механосенсорный комплекс не следует называть одним строго кавеолярным образованием.
Физическая активность меняет не только shear-стресс, но и давление, автономный тонус, чувствительность к инсулину и воспалительную среду. Улучшения FMD и некоторых показателей жёсткости наблюдались в тренировочных исследованиях, однако неоднородны. Нельзя обещать каждому участнику прирост FMD 2–4 процентных пункта и падение cfPWV 0,8–1,5 м/с за восемь недель либо назначать интенсивность по эндотелиальному напряжению, которое обычно не измеряется таким способом.
Питание, курение, сон, масса тела, липиды, давление и гликемия влияют на сосудистый риск через несколько путей. Универсальный целевой HbA1c ниже 6–6,5% для всех людей с «разобщением» не обоснован: цели зависят от диагноза, лечения и риска гипогликемии. Пищевые рекомендации не должны превращаться в обязательные высокие дозы омега-3 или полифенольных концентратов для восстановления одного фермента.
BMAL1/CLOCK/PER-программы связаны с сосудистыми ритмами; время суток, сон и утренняя гемодинамика способны влиять на функциональные измерения. Утренняя частота некоторых событий многофакторна, а не объясняется исключительно падением eNOS-экспрессии у всех людей между 6 и 9 часами. Для сравнимости исследований время измерения следует учитывать.
Обязательный перенос всех антигипертензивных препаратов на ночь не следует из этой биологии. TIME (2022) не показало преимущества вечернего приёма обычных антигипертензивных препаратов по основному сердечно-сосудистому исходу. Индивидуальное время приёма связано с назначением, переносимостью, соблюдением режима и профилем давления; универсальная хронотерапия добавками ради «предутреннего рекуплинга» не доказана.
Низкий FMD, высокий cfPWV или повышенный ADMA могут указывать на разные составляющие сосудистого риска. Ни их сочетание, ни плазменный BH4/BH2 не устанавливают самостоятельно молекулярный диагноз с готовым четырёхступенчатым комплексом добавок. Первичный практический смысл — оценка реальных клинических факторов и применение вмешательств с доказанными показаниями и исходами. Проверка экспериментального рекуплинга требует соответствующего исследовательского дизайна.
Для механистического утверждения полезно последовательно спросить: где измерен пул, что именно образует аналитический сигнал, как идентифицирован фермент-источник и какие альтернативные объяснения контролировались. Для клинического утверждения важно, менялись ли только суррогаты или также события, какова популяция, длительность и профиль нежелательных эффектов. Это сохраняет ценность eNOS как научной мишени и предотвращает ложную точность.
Повествовательный научный материал подготовлен 8 октября 2026 года. Проведены адресные проверки первичных структурных записей, человеческой последовательности NOS3, отдельных механистических работ и клинических исследований. Исправлены конкретные ошибки нумерации, химии, классификации измерений и переноса модельных результатов. Использованы доступные первичные записи и абстракты; часть полных текстов была недоступна.
Это повествовательный научный материал с целевыми проверками, а не систематический обзор, полный независимый аудит всей литературы или анализ индивидуальных данных. GRADE, внешнее рецензирование, собственные эксперименты и клиническая валидация диагностической панели не выполнялись. Неопределённости по вкладу отдельных источников ROS, тканевым пулам BH4 и переносу рекуплинга в долгосрочные исходы остаются открытыми.
Нет. Кофакторное нарушение и редуктазная утечка могут возникать при сохранении димерной организации.
Он отражает сосудистую реактивность. На неё влияют несколько механизмов; это не прямое измерение ферментного состояния.
Нет. Разные пулы и подготовка образца влияют на результат; универсальный диагностический порог не установлен.
Нет. Фармакокинетика и модельный механизм не доказывают долгосрочный эффект и безопасность для любой популяции.
Нет. TIME не показало общего преимущества вечернего приёма по основному исходу; режим определяется назначением и переносимостью.