
eNOS ajralishi: BH4, oksidlanish stressi va arteriya qattiqligi
Monomerlararo elektron oqimi, BH4/BH2 va DHFR, redoks oʻzgarish va NO–cGMP. Tomir mexanikasi, FMD/cfPWV, markerlar va klinik qayta bogʻlash dalili cheklovlari.
Monomerlararo elektron oqimi, BH4/BH2 va DHFR, redoks oʻzgarish va NO–cGMP. Tomir mexanikasi, FMD/cfPWV, markerlar va klinik qayta bogʻlash dalili cheklovlari.
Endotelial azot oksidi sintazasi (eNOS, NOS3 geni mahsuloti) tomir endoteliysi holatini azot oksidi (NO) ishlab chiqarish bilan bogʻlaydi. Domenlar uygʻun ishlaganda NADPH elektronlari L-argininni L-sitrullin va NO ga oksidlashni taʼminlaydi. Ajralish qaytaruvchi quvvatning bir qismini superoksidga yoʻnaltiradi: himoya signali kamayadi va ferment oksidlanish stressiga hissa qoʻshishi mumkin.
Tetrahidrobiopterin (BH4), uning oksidlangan 7,8-dihidrobiopterin shakli (BH2), arginin mavjudligi va oqsilning redoks oʻzgarishlari jarayonning turli qismlariga taʼsir qiladi. Ajralish har bir dimer albatta parchalanishi, organizmdagi barcha NO yoʻqolishi yoki arteriya qattiqligining yagona sababini anglatmaydi. Boshqa reaktiv kislorod manbalari NO ni sarflaydi; silliq mushak, yalligʻlanish va hujayralararo matriks ham tomir faoliyatini belgilaydi.
Hujayradagi mexanizm, inson tomir toʻqimasidagi natija, oqimga bogʻliq kengayish (FMD) yoki puls toʻlqini tezligi oʻzgarishi va klinik hodisalarning kamayishi dalilning turli darajalaridir. Ularni aralashtirish mantiqli biokimyodan asossiz diagnostik chegara va davolash sxemalarini chiqarishga olib keladi.
Inson NOS3 geni 7q36.1 sohasida joylashgan; UniProt P29474 kanonik oqsili 1203 aminokislotadan iborat. Monomer massasi taxminan 133 kDa, funksional kompleks odatda homodimerdir. N-terminal oksigenaza gem, L-arginin va BH4 ni bogʻlaydi. C-terminal reduktaza FMN, FAD va NADPH bogʻlanadigan qismlarni saqlaydi. Ularni kalmodulin sohasi va egiluvchan bogʻlovchi birlashtiradi. Domen chegarasi taʼrif va konstruktga bogʻliq, oqsil ichidagi qattiq devor emas.
Qaytaruvchi ekvivalentlar NADPH → FAD → FMN → gem yoʻlidan oʻtadi. NADPH FAD ga gidrid beradi; flavinlar ikki elektronli qaytarilishni ketma-ket bir elektronli oʻtishlarga ulaydi. Samarali dimerda bir monomerning FMN qismi ikkinchisining oksigenazasi bilan ishlaydi. Butun oqimni oʻsha monomer gemiga yopadigan tasvir muhim monomerlararo tashkilotni koʻrsatmaydi.
Kalsiy/kalmodulin FMN domenini yopiq holatdan chiqarish va gem sherigiga yaqinlashtirishga yordam beradi. Ferment FAD dan elektron olish va gemga uzatish uchun mos shakllar oʻrtasida almashadi; yagona ochiq holatda qotib qolmaydi. Fosforlanish va regulyatorlar kalsiyga talabni oʻzgartiradi. Har qanday eNOS ni avtomatik yoqadigan 100–200 nM universal sitozolik chegara yoʻq.
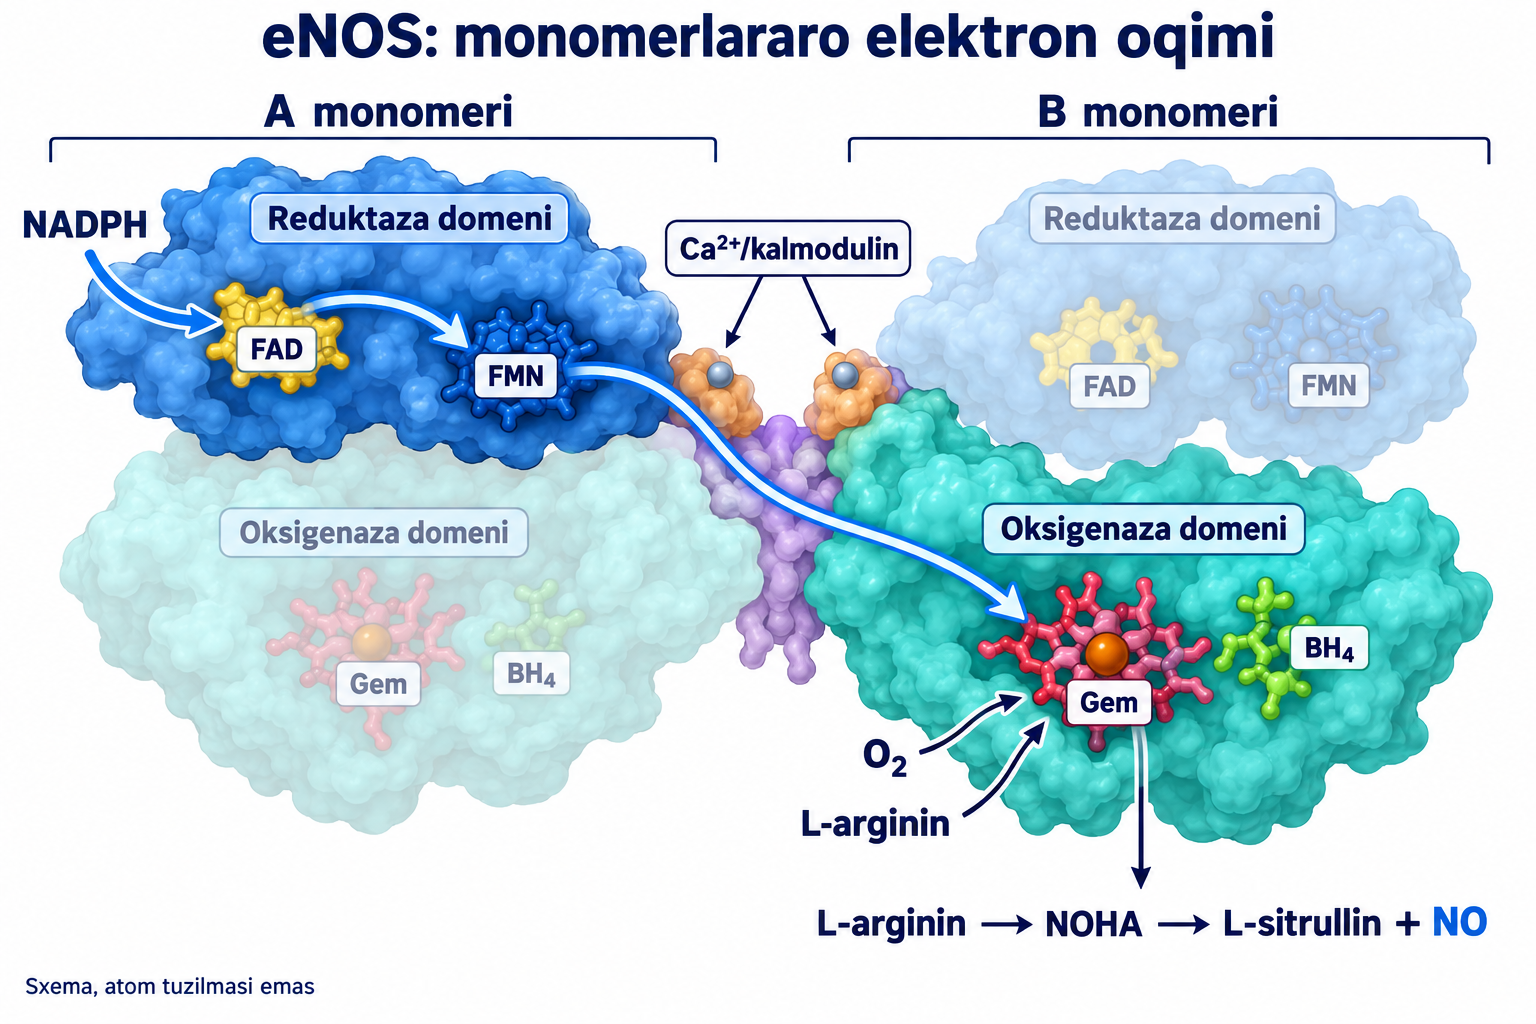
Oksigenazalar tutashuvi kofaktor joylarini va katalitik hamkorlikni tashkil qiladi. Insonning har bir monomeridagi Cys94/Cys99 bitta strukturaviy Zn²⁺ ni toʻrt tiol orqali muvofiqlashtirishi mumkin. Rux katalitik gem temirini almashtirmaydi va NO uchun elektron bermaydi. U interfeys geometriyasini qoʻllaydi; BH4 va substrat samarali holatni barqarorlashtiradi.
Tiollar oksidlanishi yoki nitrozillanishi bu markazni, kofaktor bogʻlanishini va dimer barqarorligini buzishi mumkin. Ammo butun fermentning darhol qaytmas vayron boʻlishi ortiqcha umumlashtirishdir: modifikatsiya, muhit va tiklanish imkoniyati muhim. Butun dimerning oʻzi bogʻlangan katalizni isbotlamaydi; ayrim ajralish mexanizmlari monomerlashishni talab qilmaydi.
PDB 1M9J — xlorzoksazon bilan bogʻlangan inson eNOS oksigenaza domeni; 1M9K — 7-nitroindazol bilan olingan domen. Bular ligandli domen konstruktlari, tirik endoteliydagi butun dinamik ferment emas. Mahalliy geometriyani tushuntiradi, kaveolin kompleksining doimiy stexiometriyasi, majburiy disulfid yoʻli yoki tomirdagi haqiqiy kataliz tezligini isbotlamaydi.
Fe³⁺ gem elektron olib Fe²⁺ holatiga oʻtadi va O₂ bogʻlaydi. Fe²⁺–O₂ ↔ Fe³⁺–O₂•⁻ bogʻlangan oraliq mahsulot elektron tabiatini bildiradi, har bir kompleks erkin superoksidni darhol chiqarishini emas.
Birinchi bosqich L-arginindan Nω-gidroksi-L-arginin (NOHA) hosil qiladi; ikkinchisi L-sitrullin va NO beradi. Azotning formal oksidlanishi besh elektronga teng, tashqi qaytaruvchi ekvivalentlarning yakuniy sarfi esa bir NO uchun 1,5 NADPH. Bu qarama-qarshi emas: kislorod va oraliq reaksiyalar umumiy balansga kiradi.
Keng tarqalgan biokimyoviy tenglama:
Arg va Cit arginin/sitrullinni bildiradi. Protonlar yozilishi kislota–asos kelishuviga, balans esa samarali toʻliq siklga tegishli. Elektron chiqib ketganda bir NO uchun NADPH/O₂ sarfi oshadi. Ikki bosqich oraliq holatlari farq qiladi. Gem perokso, gidroperokso va oksoferril holatlari oʻrganilgan, lekin ikkala bosqichga yagona qatʼiy Compound I yoki barcha protonlanishlarning oʻzgarmas ketma-ketligini tayinlash haddan tashqari ishonchli bayondir.
Gem yaqinidagi BH4 faol markaz, substrat bogʻlanishi va kislorod reaksiyasiga bir elektron yetkazishda qatnashadi. Katalizda radikal holatga oʻtib qayta tiklanadi; protonlanishiga qarab BH4•⁺ yoki tegishli trihidrobiopterin radikali sifatida tasvirlanadi. Qisqa muddatli oraliq holat toʻplangan BH2, toʻliq oksidlangan biopterin yoki klinik yetishmovchilikka teng emas.
Kofaktor bogʻlangan kislorodni muddatidan oldin chiqish oʻrniga samarali reaksiyaga yoʻnaltiradi, lekin barcha sizib chiqishni yoʻqotmaydi. Arginin affiniteti, gem masofasi va radikal umri konstrukt/ usulga bogʻliq. Km ning 100 dan 2–5 µM ga majburiy pasayishi barcha inson eNOS holatlariga tegishli emas. Aromatik aminokislota gidroksilazalarida BH4 sikli va regeneratsiya tizimi NOS dan farq qiladi.
Inson Ser1177, Thr495, Ser615, Ser633, Ser114 joylariga koʻp ishlatiladigan qoramol Ser1179, Thr497, Ser617, Ser635, Ser116 raqamlari mos. Qoramol konstruktidagi son inson joyi deb avtomatik qabul qilinmaydi.
| Oʻzgarish | Odatdagi mexanistik vazifa | Cheklov |
|---|---|---|
| Ser1177 fosforlanishi | Akt va boshqa kinazalar oqimni oshirib, kichikroq kalsiy signalida faollikka yordam beradi | CaM dan toʻliq mustaqillik yoki BH4 kamligida NO kafolati emas |
| Thr495 fosforlanishi | CaM hududida faollashishni koʻpincha cheklaydi; PKC muhim | Boshqa joylar/stimulga bogʻliq, har Gq eNOS ni oʻchirmaydi |
| Ser615/Ser633 | Ayrim modellarda Akt, PKA, AMPK orqali faollikni tartiblaydi | Har joy–kinaza aloqasi alohida dalil talab qiladi |
| Ser114 | Oksigenazadagi kontekstli modifikatsiya | Har doim GSK-3β/p38 va yagona tormozlovchi natija emas |
| SIRT1 deatsetillanishi | CaM sohasi va NO ni boshqaradi | Model aktivatorning davolash dozasini belgilamaydi |
Dimmeler (1999) Akt-qaram boshqaruvni koʻrsatdi; keyin boshqa joylar aniqlandi. Kuchliroq oqim bogʻlangan katalizda foydali, ajralgan fermentda esa ROS ni oshirishi mumkin. Ser1177 fosforlanishi endoteliy sogʻligʻining universal oʻlchovi emas.
Mattagajasingh (2007) qoramol Lys496/Lys506, insondagi Lys494/Lys504 ekvivalentlarini oʻrgandi. Insonning kanonik 507 joyi lizin emas; SIRT1 natijasini sharhlashda turga xos raqam muhim. Qoʻshimcha tushuntirish SIRT1 va resveratrol biologik oʻzlashtirilishi haqidagi materialda.
Gly2 N-miristoillanishi, Cys15/Cys26 qaytar S-palmitoillanishi membrana joylashuviga yordam beradi. Plazmatik membrana, kaveola, Golji va boshqa zaxiralarda kalsiy/substrat/signal sherigi farq qiladi. Har stimuldan soʻng barcha ferment bir xil majburiy yoʻl bilan koʻchmaydi.
Kaveolin-1 odatda cheklaydi, kalmodulin/Hsp90 samarali aloqani qoʻllaydi. Hsp90 Akt kabi kinazalarni ham muvofiqlashtiradi. Bundan oʻzgarmas Cav-1:eNOS 1:1, har oqimda toʻliq siqib chiqarish yoki har dimerning kortikal aktinga chiqishi kelib chiqmaydi. Kaveolin membrana arxitekturasiga ham kerak; kamligi bitta tormozni yoʻqotsa ham tomirga zarar yetkazishi mumkin.
GCH1 kodlaydigan GTP siklogidrolaza I GTP dan dihidroneopterin trifosfat hosil qilib BH4 sintezini boshlaydi. 6-Piruvoiltetrahidropterin sintaza (PTS) va sepiapterin reduktaza keyingi bosqichlarda qatnashadi. Ekspressiya, ferment faolligi, yalligʻlanish, talab zaxirani belgilaydi; koʻproq GCH1 transkripti bogʻlangan eNOS isboti emas.
DHFR NADPH bilan 7,8-BH2 ni BH4 ga qaytaradi. Bu gidroksilaza regeneratsiyasidagi xinonoid BH2 bilan ishlaydigan DHPR/QDPR dan boshqa vazifa. Sepiapterin qayta foydalanish yoʻliga ham keyingi qaytarilish, jumladan DHFR kerak. Ferment nomlari almashtirilmaydi.
Oksidlanish har doim BH4→xinonoid BH2→7,8-BH2→biopterin ketma-ketligiga boʻysunmaydi. Radikal, qayta tuzilish va oksidlovchi mahsulotlarni oʻzgartiradi. DHFR quvvati tur/toʻqimaga bogʻliq va cheklanishi mumkin. Barcha endotelial oksidlanish qaytmas yoki sepiapterin har doim samarali degan xulosa notoʻgʻri.
BH2 kofaktor joyini egallab, samarali redoks yordam bermaydi. BH4/BH2 bilan birga BH4 ning eNOS miqdoriga nisbatan mutlaq zaxirasi muhim. Kichik zaxiradagi yaxshi nisbat yetarlilik emas; biopterin umumiy oʻsishi oksidlangan mahsulot hisobidan boʻlishi mumkin.
Toʻliq oksidlangan biopterin BH2 bilan bir xil raqib emas. Hujayra, ishlov, oʻlchov nisbatni oʻzgartiradi. Normal 4–8, patologik 1:2 yoki diagnostik 1,5 universal klinik mezon emas. Plazma va tomir devori ham bir pool emas.
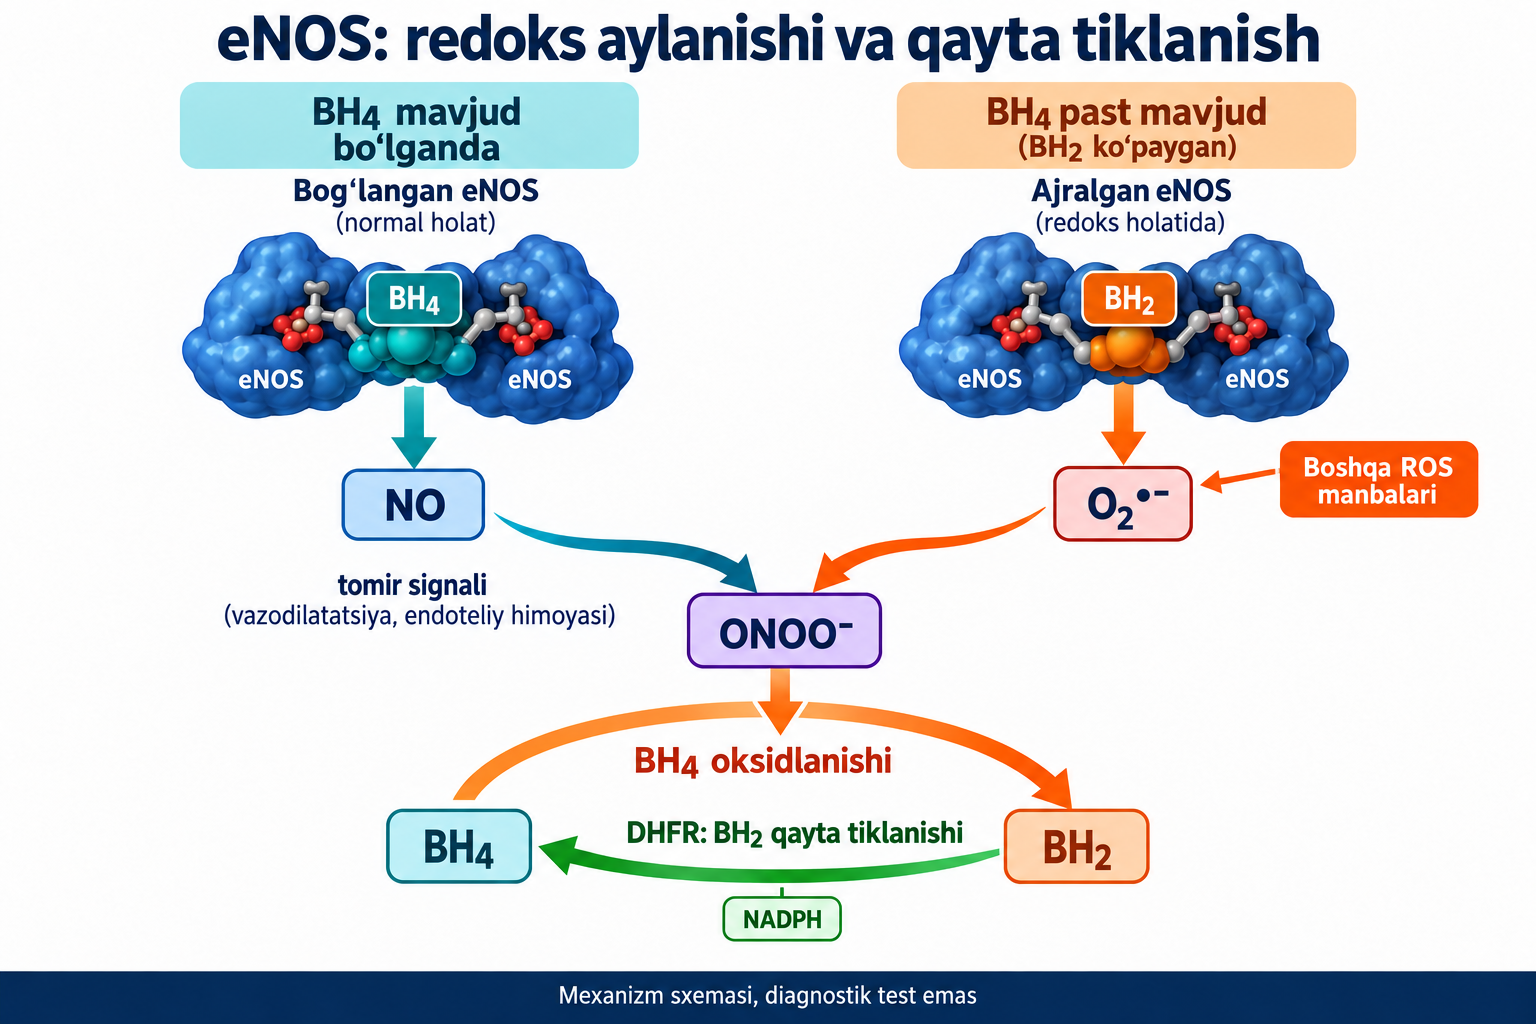
Kofaktor/substrat mos boʻlmaganda gem kislorodi superoksid boʻlib chiqishi mumkin:
Bu bitta sxematik yoʻl, toʻliq kinetika emas. Ajralish faqat ikkinchi elektron toʻxtashi yoki 15–25 s⁻¹ doimiy aylanishga teng emas. Reduktaza modifikatsiyasi boshqa yoʻl beradi; NOS tormozi/kalsiy olib tashlanishi barcha ROS ni bir xil bostirmaydi.
Superoksid zaryadli, NO ga nisbatan cheklangan diffuziyali. Mahalliy hosil va antioksidant raqobat muhim; bitta umumiy subintimal poolga avtomatik oʻtmaydi. Membrana, sitozol, organella ikkilamchi oksidlovchi orqali gaplashadi, lekin bir kimyoviy joyga aylanmaydi.
Tezlik konstantasi tegishli sharoitda 10⁹–10¹⁰ M⁻¹s⁻¹ atrofida, diffuziya chegarasiga yaqin, undan yuqori emas. Superoksid dismutaza bilan raqobat konsentratsiyaga ham bogʻliq:
Qavslar mahalliy molyar konsentratsiya, k tegishli konstantalarni bildiradi. Bu barcha hujayraviy diffuziya/raqobatni ifodalamaydi. Mitoxondrial SOD2 materiali joylashuv ahamiyatini tushuntiradi.
Peroksinitrit protonlanishi va CO₂ reaksiyasi qoʻshimcha faol turlar beradi. Muhitga qarab lipid, oqsil, BH4, mitoxondriya oksidlanadi/nitrlanadi. SOD2 Tyr34 tajribadagi nishon, barcha mitoxondriya halokati emas. sGC gemining oksidlanishi/yoʻqolishi NO javobini kamaytiradi, har NO donorni mutlaqo samarasiz qilmaydi.
BH4 oksidlanishi, kam NO va superoksid oʻzaro kuchayishi mumkin. NADPH oksidaza, ksantin oksidaza, mitoxondriya, yalligʻlanish hujayralari ham qatnashadi. NOX4 NOX1/NOX2 ga teng emas: koʻpincha H₂O₂ bilan bogʻliq, kontekstga qarab himoyalovchi yoki zararli. Barcha NOX bir xil yomon superoksid manbai emas.
Chen (2010) inson reduktaza Cys689/Cys908 S-glutationillanishi NO ni kamaytirib ROS ni oshirishini koʻrsatdi; qoramol raqamlari farq qiladi. Aralash disulfid GSSG yoki tiol radikali orqali hosil boʻladi. Bir universal GSH/GSSG chegarasi yoʻq.
Reduktaza oqimi L-NAME yoki kalsiy kamayishiga faqat oksigenaza yoʻli kabi javob bermasligi mumkin. Dimer ajralishi majburiy emas. Glutaredoksin/tioredoksin tiklashi eksperimental oʻrganilgan, klinik davolash protokolini tasdiqlamaydi.
Tashqi arginin, umumiy hujayraviy miqdor va mahalliy eNOS yaqinidagi substrat farq qiladi. CAT-1, ASS1/ASL yetkazish/kanallashishga yordam beradi. Shu bois Km dan yuqori konsentratsiyada ham qoʻshimcha arginin baʼzan NO ni oʻzgartiradi, ammo hamma bemorga foyda kafolati emas.
Arginaza I asosan sitozolda, II mitoxondriyada argininni ornitin va mochevinaga aylantiradi. Ornitin poliamin/prolin yoʻliga kiradi. Quvvat, transport, joylashuv universal 1000 karra Km taqqosidan yoki har kaveoladagi doimiy tanqislikdan muhimroq. Substrat cheklanishi va BH4 oksidlanishi bogʻliq, lekin alohida mexanizm.
I tur PRMT oqsildagi argininni asimmetrik metillaydi; proteoliz ADMA chiqaradi. ADMA NOS ni raqobatli tormozlaydi. Kam NO ning oʻzi elektron kislorodga ketishini isbotlamaydi.
DDAH1 ADMA gidroliziga qatnashadi; buyrak yoʻllari va AGXT2 ham konsentratsiyani belgilaydi. Ragavan (2023) tekshirgan biokimyoviy/biologik modellarda DDAH2 bevosita ADMA gidrolizi qoʻllab-quvvatlanmadi. Uning tomir taʼsirini shu katalitik reaksiyaga avtomatik bogʻlab boʻlmaydi. Konstrukt Cys274 joyini inson oqsiliga tur/ketma-ketliksiz koʻchirish notoʻgʻri.
NO eruvchan guanilat siklaza gemiga bogʻlanib temir–gistidin muvofiqligini oʻzgartiradi; GTP dan cGMP/pirofosfat hosilini oshiradi. cGMP PKG ni faollashtiradi; fosfodiesteraza signal muddat/tarqalishini cheklaydi. Har qanday NO cheksiz cGMP bermaydi.
PKG membrana potensiali, kalsiy chiqishi/qaytishi va qisqarish sezgirligini boshqaradi. BKCa, IRAG/IP₃R, SERCA, RhoA/ROCK–MYPT1–miozin fosfataza turli modellarda qatnashadi. Kam kalsiy yengil zanjir kinazasini kamaytiradi, fosfataza boʻshashishga yordam beradi. Hammasi bevosita IP₃R tormozi yoki faqat SERCA2a emas. NO trombotsitga ham taʼsir qiladi.
Fiziologik NO trombotsit va leykotsit yopishishini cheklaydi. NF-κB p50/IKK kabi qismlarning nitrozillanishi modelda signalni oʻzgartiradi. Barcha NO yalligʻlanishga qarshi emas: kuchli iNOS oqimi va oksidlovchi muhit boshqa natija beradi.
NF-κB VCAM-1, ICAM-1 va xemokinlarni tartiblaydi. CCL2/CCR2, VLA-4/LFA-1, dumalash, mustahkam yopishish va diapedez koʻp hujayra/bosqichni qamraydi, yagona eNOS ketma-ketligi emas.
Arteriyada apoB-lipoprotein ushlanishi aterogenezga muhim. Agregatsiya/modifikatsiya CD36 va scavenger retseptorlar orqali yutilishni kuchaytiradi. Har kirish uchun endoteliy yoʻqolishi shart emas; oksidlangan LDL yagona boshlovchi emas. Koʻpikli hujayra faqat M1 makrofagning boshqarilmagan fagotsitozidan emas, silliq mushakdan kelgan hujayralardan ham hosil boʻladi.
ACTA2, MYH11, CNN1, TAGLN oʻzgarishini SRF/miokardin, KLF4 boshqaradi. KLF4 DNK demetilaza fermenti emas. Holatlar spektriga himoya fibroz qopqogʻiga matriks ishlab chiqaruvchilar, lipid/yalligʻlanish/kalsifikatsiya bilan bogʻliq turlar kiradi.
Migratsiya, matriks va RUNX osteogen dasturi muhitga bogʻliq. Har oʻtish zararli emas; eNOS tiklanishi barcha blyashka qayta qurilishini yolgʻiz qaytarmaydi.
Oksidlanish/nitrozativ stress DNK va mitoxondriyani zararlaydi. Kuchli PARP1 NAD⁺ ni sarflab energiyani buzadi. Oʻlim faqat kaspazali apoptoz emas, PARP bilan bogʻliq partanatos va boshqa yoʻllarni qamrashi mumkin.
NO, telomeraza/TERT va yashash aloqasi modelda tekshirilgan; universal telomer himoyasi/yosharish isboti emas. SASP IL-6, IL-8, PAI-1 bilan oʻzgaradi. Endotelial progenitorlar geterogen: CD34/CD133/VEGFR2 gematopoetik proangiogen hujayralar boʻlishi mumkin, avtomatik endothelial colony-forming cells emas. Bir qon testi haqiqiy taʼmirning 70–80% universal pasayishini koʻrsatmaydi.
Qattiqlik silliq mushak tonusi, geometriya, sitoskelet, matriks va kengaytiruvchi bosimni birlashtiradi. NO funksional qismga, elastin/kollagen/kalsifikatsiya uzoq strukturaga taʼsir qiladi. Yosh, buyrak kasalligi va gipertoniya bir necha yoʻldan hissa qoʻshadi, faqat eNOS sabab emas.
Arterial elastinning koʻpi hayot boshida hosil boʻlib sekin yangilanadi. Yalligʻlanish/redoks MMP-2, MMP-9, MMP-12 va boshqa proteazalarni oʻzgartiradi. Prodomen sistein kaliti modifikatsiyasi faollikka taʼsir qiladi, lekin oksidlovchi sharoitga qarab faollashtirishi yoki inaktivlashi mumkin. Elastin parchalanishi yukni kollagenga oʻtkazadi, faqat eNOS dan boshlanadigan majburiy MMP kaskadini isbotlamaydi.
Mushak va adventitsial fibroblast TGF-β/mexanik signal orqali kollagen I/III, fibronektinni boshqaradi. Misga qaram lizil oksidaza (LOX) lizin/gidroksilizinni oksidativ dezaminlab fermentli koʻndalang bogʻ beradi. LOX lipoprotein retseptori LOX-1 emas. Elastinning normal yetilishiga ham kerak; barcha vazifasi patologik zichlashish emas.
Shakar/dikarbonilning fermentga bogʻliq boʻlmagan reaksiyasi AGEs beradi. Glukozepan va pentozidin koʻndalang bogʻ hosil qiluvchi mahsulotlarni oʻz ichiga oladi. Nε-Karboksimetillizin (CML) muhim addukt/marker, ammo oʻzi molekulalararo koʻndalang bogʻ emas. Ayrim AGE RAGE orqali yalligʻlanish va oksidlanishga taʼsir qiladi, lekin affinitet/mexanik vazifa turlicha.
Alohida kollagen tolasi moduli tirik koʻp qatlamli arteriya samarali moduliga teng emas. 100–1000 MPa material qiymatini klinik toʻlqin formulasiga toʻgʻridan-toʻgʻri kiritib boʻlmaydi. Tolalarning nochiziqli ishga qoʻshilishi va oʻlchov bosimi muhim.
Aorta sistolik energiyaning bir qismini yigʻib diastolada qaytaradi. Ulush gemodinamikaga bogʻliq; zarba hajmining doimiy 50%i universal qonun emas. Bosim toʻlqini tezligi qon oqimi tezligidan farq qiladi.
Yupqa elastik nay uchun Moens–Korteweg yaqinlashuvi:
c — tezlik, Einc — joriy choʻzilishdagi inkremental modul, h — qalinlik, R — radius, ρ — suyuqlik zichligi. Ideal geometriya faraz qilinadi; cheklanish, devor qalinligi, viskoelastiklik va geterogenlik tuzatishni talab qiladi.
Bramwell–Hill hajmiy choʻziluvchanlik bilan bogʻlaydi:
V — segment hajmi, P — bosim. dV/dP mutlaq moslashuvchanlik, DV nisbiy choʻziluvchanlik; birliksiz birlashtirilmaydi. Modellar yaqin fizik munosabatni ifodalaydi, har aortada aniq ayniyat emas.
Qattiq devor odatda toʻlqinni tez oʻtkazadi. Qaytish impedans/geometriya/devor oʻzgaradigan butun daraxtda taqsimlangan, yagona arteriola nuqtasi emas. Tez qaytish kech sistolik yukni oshirishi mumkin; markaziy bosimga oldinga toʻlqin, yurak chiqarishi, boʻy, puls ham taʼsir qiladi. Yoshdagi qaytish klapan yopilishiga doim mos emas; AIx sof qattiqlik oʻlchovi emas.
Puls bosimi sistolik minus diastolikdir. Qattiq aorta izolyatsiyalangan sistolik gipertoniya, keyingi yuk, chap qorincha gipertrofiyasi/diastolik buzilish bilan kechishi mumkin. Ayrim vaziyatda past diastolik bosim koronar perfuziyani kamaytiradi. Lekin ikkala koronar arteriya oqimi faqat diastolada emas; ustunlik ayniqsa chap qorincha uchun va hududga bogʻliq.
Pulsatsiya past qarshilikli organga oʻtadi. Glomerula, kichik miya tomiri va retina bosim/puls/autoregulyatsiyaga sezgir. Albuminuriya, buyrak pasayishi, oq modda, lakuna, retinal oʻzgarish bogʻliqliklari muhim, bir eNOS holatidagi muqarrar gidravlik zarba emas. Toʻsiq va hamroh kasallik natijani oʻzgartiradi.
FMD reaktiv giperemiyadan keyin braxial arteriya diametrini baholaydi. Koʻp protokolda bilakning besh daqiqalik okklyuziyasi va yuqori chastotali UTT kuzatuvi ishlatiladi. Tayyorgarlik, manjet, oqim, maksimum aniqlash standartlashadi. Bu tadqiqot metodining izohi, mustaqil ishemiya chaqirish yoʻriqnomasi emas.
Dbase boshlangʻich, Dpeak belgilangan oynadagi maksimal diametr. 4,00→4,24 mm oʻsish 6% beradi. Choʻqqi doim 60–90 soniyada emas; bir qatʼiy payt bahoni suradi. Diametr, shear stimuli, ovqat, chekish, dori, soat, operator taʼsir qiladi.
Thijssen (2019) standartlashni taʼkidlaydi. FMD muhim NO komponentli endotelial funksiyani oʻlchaydi, bazal sintez yoki ajralgan eNOS ulushini emas. 6,5–7% barcha populyatsiyada molekulyar mezon emas. NO donor javobi mushakni tegishli klinik protokolda tekshiradi; NMD>15–20% universal meʼyor berilmaydi.
Inaba (2010) kuzatuv kohortalarida yuqori FMD va kam hodisani bogʻladi. Har foiz punkt assotsiatsiyasi qoʻshimcha bilan oshirishdan sababiy profilaktika vaʼdasi emas. Ish International Journal of Cardiovascular Imaging da chiqqan.
Periferik tonometriya okklyuziyadan keyin barmoq pulsini yozadi. RHI tekshiruv tomonidagi keyin/oldin nisbat, nazorat va qurilma algoritmini qoʻllaydi. Operatorga bogʻliqlik kamayadi, lekin harorat, simpatik tonus, boshlangʻich signal/sifat qoladi. Barmoq mikrotomiri braxial FMD bilan almashtirilmaydi, NO qaramligi ham bir xil emas.
RHI 1,67/2,10 ayrim qurilma/tadqiqot tasnifida bor, lekin eNOS tashxisi yoki universal davo emas. Belgilangan toʻlqinda:
AP — augmentatsiya bosimi, PP — puls bosimi, P1/P2 — algoritm nuqtalari. Yopiq barmoq indeksi markaziy aorta AIx iga avtomatik teng emas. 75/min normallash yosh, boʻy, jins, tonus/chiqarish shaklini olib tashlamaydi. Universal jinsiy chegaralar ajralish isboti emas.
cfPWV asosan aortik yoʻlning hududiy qattiqligini koʻrsatadi. Toʻlqin oyoqlari kechikishi va validlangan masofa oʻlchanadi:
Deff metr, Δt soniya, natija m/s. 0,60 m/0,060 s=10 m/s. Toʻgʻri masofaning 0,8 koeffitsienti muayyan standartga tegishli, barcha asbob/anatomiyaga yagona tuzatish emas.
Yosh/joriy bosim cfPWV ni oʻzgartiradi. Taxminan 10 m/s tegishli usulda ayrim qattiqlik/subklinik zararlanish tasnifida ishlatiladi, biokimyoviy eNOS chegarasi emas. Har kishining xavfi albatta ikki baravar boʻlmaydi. Mitchell/Ben-Shlomo kohorta/birlashtirilgan maʼlumotda prognoz aloqasini koʻrsatdi; qoʻshimcha prognoz bitta sonni davolash foydasi emas.
BH4 ishlovda oson oksidlanadi. Olish, barqarorlashtirish, saqlash, ajratish/aniqlash validlangan boʻlishi kerak. Elektrokimyoviy/fluorestsent HPLC va LC-MS/MS turli vazifani bajaradi; stabilizator/harorat laboratoriya metodiga moslanadi.
Antoniades (2007) plazma va tomir biopterinlari funksiya/yalligʻlanish bilan turlicha bogʻlanishini koʻrsatdi. Plazma har eNOS kofaktor choʻntagini ochib bermaydi. Nisbatlar:
Maxrajlari turli oʻlchovsiz indekslar validlangan klinik bogʻlanish indekslari emas. Pastlik pool haqidagi gipotezani qoʻllaydi, manba/lokalizatsiya/dozani aniqlamaydi.
3-Nitrotirozin peroksinitritdan tashqari miyeloperoksidaza/nitrit bilan ham hosil boʻladi. Erkin yoki oqsilga bogʻlangan shakl, LC-MS/ELISA yagona diapazonli emas. MDA/F₂-izoprostan lipid oksidlanishini koʻrsatadi, namuna/metod/metabolizmga bogʻliq, eNOS ga xos emas. ADMA/Arg:ADMA substrat/tormoz/buyrak muhiti haqidadir.
| Koʻrsatkich | Asosiy maʼno | Ajralishni oʻzi isbotlamasligi |
|---|---|---|
| FMD | Katta arteriyaning oqim javobi | Stimulus, diametr, koʻp yoʻl |
| RHI | Barmoq mikrotomir javobi | Algoritm, simpatik tonus |
| cfPWV | Aorta toʻlqini/hudud qattiqligi | Yosh, bosim, geometriya, matriks |
| BH4/BH2 | Namunalangan pool redoksi | Plazma ferment joyi emas |
| ADMA/Arg:ADMA | Tormoz/substrat/metabolizm | Tormozlash kislorod sizishi emas |
| 3-Nitrotirozin | Nitrlash kimyosi | Koʻp yoʻl/analitik shakl |
| MDA/F₂-izoprostan | Lipid oksidlanishi | Ferment manbaini bermaydi |
| sVCAM-1 | Yalligʻlanish/endoteliy faolligi | Koʻp toʻqima/signal |
| Endotelin-1 | Vazoaktiv kontur | Plazma mahalliy tonus emas |
NO/sitrullin, kimyoviy xos ROS, pteridin, oqsil modifikatsiyasi va yoʻnaltirilgan aralashuv javobi birga kuchliroq dalil. Past haroratli SDS dimer/monomerda ham cheklov bor. Mahsulot ajratilmagan DHE fluoresans superoksidning xos miqdoriy testi emas. L-NAME barcha reduktaza yoʻlini qamramaydi; manba nazorati kerak.
Sapropterin BH4 dori shakli, ayniqsa BH4-sezgir fenilketonuriyada koʻrsatmasi bor; barcha yuqori cfPWV/past FMD uchun tasdiq emas. Stroes/Heitzer muayyan sharoitda mahalliy BH4 bilan tomir javobini yaxshiladi. Mahalliy tajriba, FMD/boshqa vazodilatatsiya usuli va uzoq ogʻizdan kurs alohida.
Cunnington (2012) koronar randomizatsiyalangan ishda ogʻiz BH4 umumiy biopterinni oshirganiga qaramay kutilgan endotelial/redoks foyda bermaganini topdi. Oksidlanish/taqsimlanish cheklovda muhim. Bu barcha preparat oʻzlashtirilishi 8–10% dan pastligini belgilamaydi, BH2, nishon toʻqima/funksiya ahamiyatini koʻrsatadi.
Antoniades (2006) inson tomiri va bypass bemorida 5-metiltetrahidrofolat (5-MTHF) ni tekshirdi; superoksid kamayib, BH4 mavjudligi va funksiya yaxshilandi. Barcha koronar bemorga 5–10 mg/kun uzoq oral kurs tasdigʻi emas. 5-MTHF BH4 choʻntagidagi isbotlangan oʻrinbosar emas, DHFR bevosita bogʻlanish/himoyasi barcha folat taʼsirining qatʼiy mexanizmi emas.
Foliy kislota, qaytarilgan shakl, DHFR, bir uglerodli almashinuv aloqali, lekin teng emas. Tanqislik, gomotsistein, surrogat, hodisa alohida dalil soʻraydi. Qisqa ex vivo javob/plazma nisbati profilaktik metilfolat dozasini bermaydi.
Oral arginin ichak/jigarda metabolizlanadi, transport/arginaza cheklaydi. 60–70% aynan jigarda doimiy yoʻqolish universal kinetika emas. Sitrullin arginaza substrati emas, presistemik sarfning katta qismini chetlab oʻtadi; buyrak ASS1/ASL arginin hosil qiladi. Ichki sikl ham NOS taʼminotiga qatnashadi.
Schwedhelm (2008) farmakokinetikani oʻrgandi. Plazma arginin oʻsishi kam sizish, barqaror cfPWV yoki infarkt profilaktikasi kafolati emas. Sitrullin har tashxis uchun mukammal muqobil emas; oddiy qabuldan klinik ahamiyatli bevosita allosterik arginaza tormozi bu ishda tasdiqlanmagan.
Schwedhelmning 20 sogʻlom ishtirokchidagi bir haftalik kesishma tadqiqotida hech bir qabul tartibi FMDni boshlangʻich qiymatga nisbatan yaxshilamadi. Farmakokinetik oʻzgarish bilan tomir faoliyati yaxshilanishi alohida yakuniy koʻrsatkichlardir.
VINTAGE MI (Schulman,2006) ilk STEMI dan keyin 153 bemorda standart davoga arginin/plasebo qoʻshdi. Qattiqlik/chiqarish fraksiyasi yaxshilanmadi; argininda olti, plaseboda nol oʻlim kuzatilib xavfsizlik sabab yopildi. Bu har arginin har odamga zarar isboti emas, ammo oʻtkir infarktdan keyin tavsiya qilmaslik va oddiy metabolitni avtomatik xavfsiz demaslikka asos.
Askorbat pteridin radikalini qaytaradi; α-tokoferol lipid zanjirini uzadi. Suv/lipid chegarasidagi hamkorlik kimyoviy asosli, potensial esa juft/pH/muhitga bogʻliq. Bir standart son inson tomiridagi terapevtik sinergiya emas.
C ayrim tajribada javobni yaxshiladi. Har yuqori C/E faqat eNOS orqali yoki hodisani oldini olib ishlaydi degan dalil yoʻq. Infuziya, ovqat, oral qoʻshimcha hujayra sharoitini bir xil takrorlamaydi. Universal profilaktik kurs kelib chiqmaydi.
Resveratrol hujayra/hayvonda SIRT1, AMPK, FOXO bilan bogʻlangan, har testda teng xos bevosita aktivator emas. EGCG PI3K/Akt/eNOS, retseptor/redoksda; antotsian/proantotsianidin ekspressiya/yalligʻlanishda oʻrganiladi. Yagona 67LR–Fyn, universal NOS3 3′-UTR yoki majburiy miR-155 uchun aniq birikma/model dalili kerak.
Molekulyar foyda soʻrilish, uzoq samaradorlik, birlashtirilgan ekstrakt xavfsizligini bermaydi. Resveratrol/pterostilben, OPC, EGCG dozali majmua validlangan qayta bogʻlash algoritmi sifatida tavsiya etilmaydi. Ovqat modeli va dori konsentratsiyasi farq qiladi.
Statin mevalonat va kichik GTPaza prenillanishi uchun izoprenoidni kamaytiradi. RhoA/ROCK, NOS3 mRNK barqarorligi, Akt, biopterin eksperimental taʼsirga bogʻliq. Bu butun foyda sababi emas: apoB-lipoprotein kamayishi mustaqil dalilga ega. Universal mRNK karra oʻsishi yoki barcha Thr495 ni bevosita yoʻqotish shart emas.
ACE ingibitori/AT1 blokatori angiotenzin va ayrim NOX stressini kamaytiradi, ACE bradikininni oʻzgartiradi. Angiotenzin II yagona oksidlovchi emas. Tanlash klinikaga asoslanadi, eNOS strelkasi yoki PPARγ uchun hamma telmisartan olishi emas.
SGLT2 ingibitori/GLP-1R agonisti tegishli guruhda klinik natijaga ega. Vazn, gemodinamika, buyrak, metabolizm/yalligʻlanish endoteliyga aloqali. NHE1, AMPK/SIRT1, bevosita endotelial GLP-1R izohlari kontekstli; funksional retseptorlar bir tekis tarqalmaydi. Barcha foydani isbotlangan toʻgʻridan-toʻgʻri eNOS tiklanishi deyish notoʻgʻri.
Statin intensivligi aniq preparat/dozaga bogʻliq. Koʻrsatma, hamroh holat, kuzatuv kerak; mexanizm dori tayinlash oʻrniga oʻtmaydi.
| Yondashuv | Mexanistik asos | Asosiy cheklov |
|---|---|---|
| Mahalliy BH4 | Tanlangan NO tomir javobi | Uzoq oral kurs/hodisa emas |
| Oral BH4 | Pool oksidlanish/taqsimlanishga bogʻliq | Koronar ishda kutilgan funksiya yoʻq |
| 5-MTHF | Inson toʻqimasi, BH4/ROS | Universal oʻrinbosar/doza emas |
| Arginin/sitrullin | Substrat/farmakokinetika | Surrogatlar turlicha, VINTAGE MI xavfi |
| C/E/polifenol | Kimyo va model | Klinik sinergiya tasdiqlanmagan |
| Statin/RAS | Koʻrsatma va mexanizm | eNOS yagona mediator emas |
| SGLT2/GLP-1R | Tegishli populyatsiya | Barcha dori/toʻqima bevosita yoʻli emas |
| Harakat | Gemodinamika/metabolik moslashish | Universal shear/FMD/cfPWV kafolati yoʻq |
Siljish zoʻriqishi glikokaliks, membrana, integrin, PECAM-1/VE-kadgerin/VEGFR, ion kanal/sitoskelet orqali seziladi. Barqaror yoʻnalgan oqim PI3K/Akt, KLF2/KLF4, SIRT1 orqali NOS3, toʻsiq va yopishishga qarshi holatni qoʻllaydi. Tebranma oqim/bifurkatsiya boshqa signal. Glikokaliks va hujayralararo sensor yagona qatʼiy kaveola tuzilmasi emas.
Mashq bosim, avtonom tonus, insulin sezgirligi va yalligʻlanishni ham oʻzgartiradi. FMD/qattiqlik foydasi turlicha. Har kimga sakkiz haftada 2–4 FMD punkt va 0,8–1,5 m/s cfPWV kamayishi vaʼda qilinmaydi; odatda shu tarzda oʻlchanmaydigan endotelial zoʻriqish bilan universal yuk belgilanmaydi.
Ovqat, chekish, uyqu, massa, lipid, bosim/glikemiya koʻp yoʻlga taʼsir qiladi. Barcha taxminiy ajralishga HbA1c<6–6,5% maqsad asossiz: tashxis, davo, gipoglikemiya xavfi kerak. Ovqat maslahatini bitta ferment uchun majburiy yuqori omega-3/polifenol dozasiga aylantirib boʻlmaydi.
BMAL1/CLOCK/PER tomir ritmlarida qatnashadi. Soat, uyqu, ertalabki gemodinamika testni oʻzgartiradi. Tong hodisasi koʻp omilli, hamma odamda 6–9 orasida eNOS kamayishi bilan cheklanmaydi; oʻlchovlarni taqqoslashda vaqt hisobga olinadi.
Barcha antihipertenzivni kechaga koʻchirish shu biologiyadan kelib chiqmaydi. TIME (2022) asosiy yurak-tomir natijasida kechki qabul ustunligini topmadi. Tayinlash, chidamlilik, rioya va bosim profili vaqtni belgilaydi. Tongdan oldingi universal qoʻshimcha xronoterapiya isbotlanmagan.
Past FMD, yuqori cfPWV/ADMA xavfning turli qismini bildirishi mumkin. Ularni BH4/BH2 bilan birlashtirish tayyor toʻrt bosqichli qoʻshimcha majmuaga molekulyar tashxis bermaydi. Muhim yoʻnalish haqiqiy klinik omillar va koʻrsatma/natijasi dalilli aralashuvdir. Eksperimental qayta bogʻlash tegishli tadqiqot dizaynini talab qiladi.
Mexanistik daʼvoda pool joyi, signal kimyosi, ferment manbai va muqobil nazorat aniqlanadi. Klinik daʼvo surrogat/hodisa, populyatsiya, muddat va nojoʻya taʼsirni ajratadi. Bu ilmiy qiymatni saqlab, yolgʻon aniqlikni cheklaydi.
Narrativ ilmiy material 8-oktabr 2026 kuni birlamchi strukturaviy yozuv, inson NOS3 ketma-ketligi va tanlangan mexanistik/klinik ishlar maqsadli tekshiruvi bilan tayyorlandi. Mavjud birlamchi yozuv/annotatsiya qoʻllandi; ayrim toʻliq matnlar mavjud emas edi. Tur, kompartment, analitik xoslik va populyatsiya talqinda hisobga olindi.
Tizimli sharh, barcha adabiyot mustaqil auditi, individual maʼlumot tahlili, GRADE, tashqi taqriz, yangi tajriba yoki klinik panel validatsiyasi bajarilmadi. ROS manbasi hissasi, toʻqimadagi BH4 zaxirasi va uzoq klinik natijalar noaniqligi saqlanadi.
Yoʻq. Kofaktor buzilishi va reduktaza sizishi butun dimerda ham boʻlishi mumkin.
U bir necha mexanizmli tomir reaktivligini oʻlchaydi, ferment holatini bevosita emas.
Yoʻq. Joylashuv va namuna ishlovi muhim; universal diagnostik chegara yoʻq.
Yoʻq. Kinetika/model barcha guruhda uzoq samaradorlik va xavfsizlikni bermaydi.
Yoʻq. TIME umumiy ustunlik topmadi; vaqt tayinlash va chidamlilikka bogʻliq.