
Desacoplamiento de eNOS: BH4, estrés oxidativo y rigidez arterial
Transferencia entre monómeros, BH4/BH2 y DHFR, modificaciones redox y señal NO–cGMP. Mecánica arterial, FMD/cfPWV, biomarcadores y límites del reacoplamiento clínico.
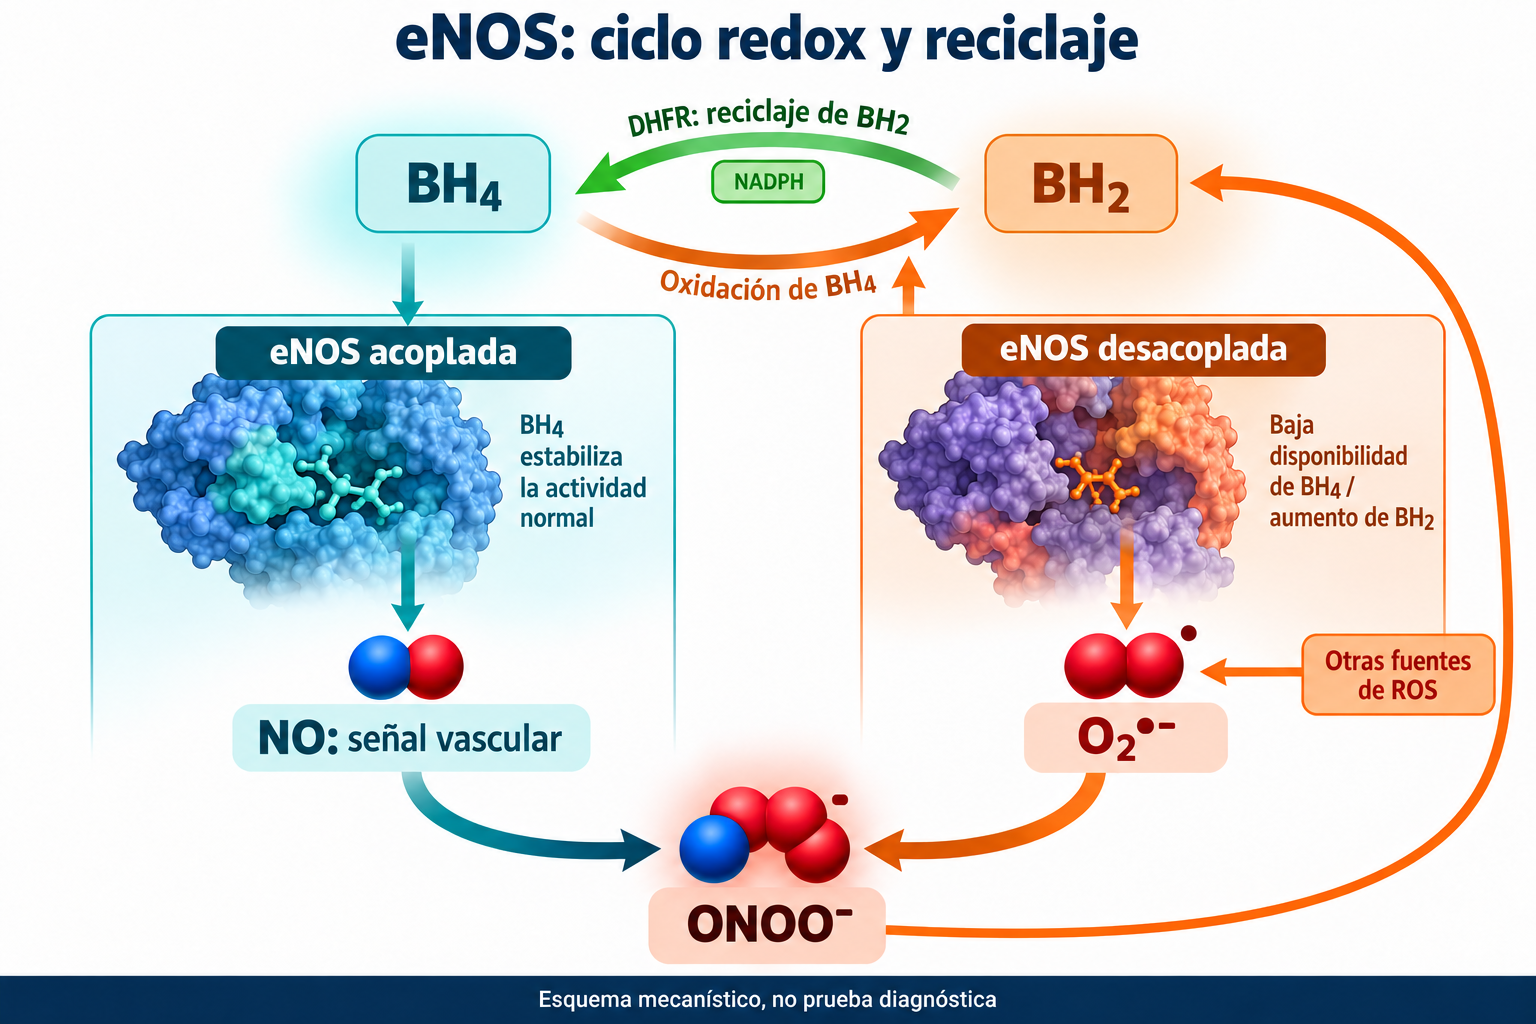
La sintasa endotelial de óxido nítrico (eNOS), producto del gen NOS3, conecta el estado del endotelio vascular con la producción de óxido nítrico (NO). Cuando sus dominios trabajan de forma coordinada, los electrones de NADPH permiten oxidar L-arginina a L-citrulina y NO. El desacoplamiento desvía parte de esa capacidad reductora hacia la formación de superóxido: disminuye la señal protectora y la enzima puede contribuir al estrés oxidativo.
La tetrahidrobiopterina (BH4), su forma oxidada 7,8-dihidrobiopterina (BH2), la disponibilidad de arginina y las modificaciones redox de la proteína afectan aspectos diferentes del proceso. El desacoplamiento no implica que todos los dímeros se desintegren, que desaparezca todo el NO del organismo o que exista una única causa de rigidez arterial. Otras fuentes de especies reactivas consumen NO; el músculo liso, la inflamación y la matriz extracelular también intervienen.
Un mecanismo celular, un hallazgo en tejido vascular humano, un cambio en dilatación mediada por flujo (FMD) o velocidad de onda de pulso, y una reducción de eventos clínicos constituyen niveles diferentes de evidencia. Confundirlos convierte una bioquímica plausible en umbrales diagnósticos y tratamientos injustificados.
Arquitectura y ciclo catalítico productivo
Dominios y transferencia entre monómeros
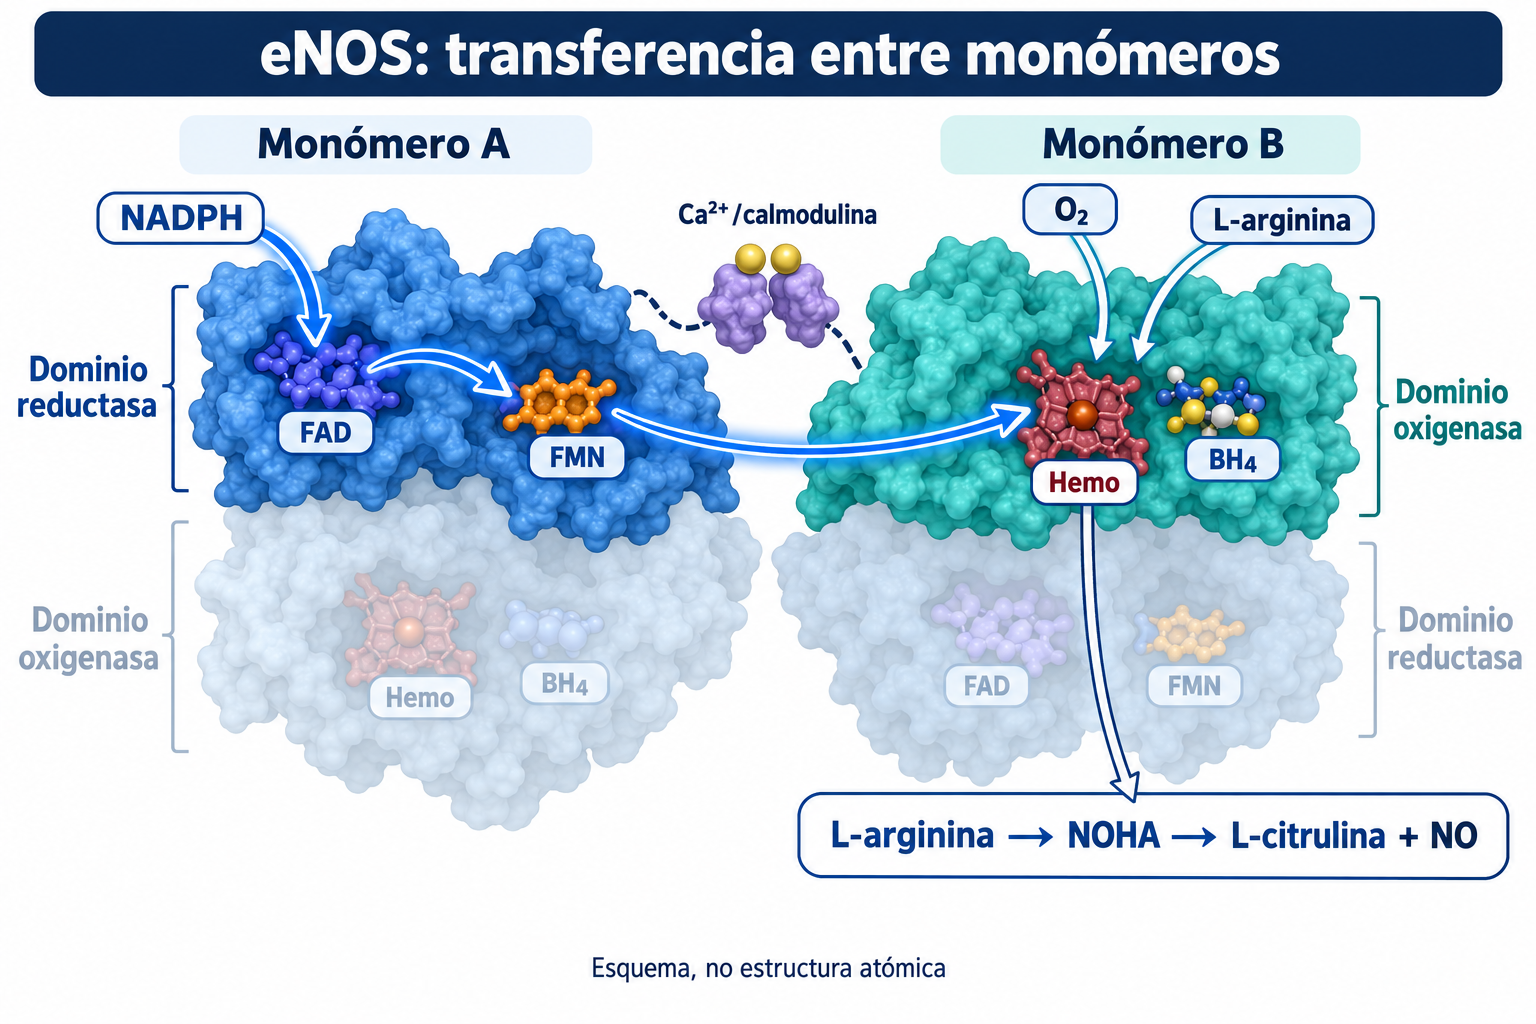
El NOS3 humano se sitúa en 7q36.1; la secuencia canónica UniProt P29474 tiene 1203 aminoácidos. Cada monómero pesa aproximadamente 133 kDa y el complejo funcional suele ser un homodímero. La región oxigenasa N-terminal une hemo, L-arginina y BH4. La región reductasa C-terminal contiene zonas de unión a FMN, FAD y NADPH. Un segmento de unión a calmodulina y una bisagra flexible permiten movimientos relativos. Los límites de los dominios dependen de la definición y del constructo; no son paredes rígidas dentro de la proteína.
Los equivalentes reductores siguen NADPH → FAD → FMN → hemo. NADPH entrega un hidruro a FAD; las flavinas conectan la reducción de dos electrones con transferencias sucesivas de un electrón. En el dímero productivo, la región con FMN de un monómero interactúa con la oxigenasa del otro. Una figura que devuelve todo el flujo al hemo del mismo monómero omite esta organización intermonomérica.
Calcio/calmodulina facilita la salida del dominio FMN de estados cerrados y su contacto con el compañero de hemo. La enzima alterna entre configuraciones adecuadas para recibir electrones de FAD y para entregarlos al hemo; no permanece en una única posición abierta. La fosforilación y los reguladores modifican la dependencia de calcio. No existe un umbral citosólico universal de 100–200 nM que active automáticamente cualquier eNOS.
Interfaz dimérica, zinc y límites estructurales
La interacción entre oxigenasas organiza los sitios de cofactor y la cooperación catalítica. Cys94 y Cys99 de cada monómero humano pueden coordinar un Zn²⁺ estructural formando un centro de zinc tetratiolato. El zinc no sustituye al hierro catalítico del hemo ni dona electrones al NO. Su función depende de la geometría de la interfaz; BH4 y sustrato favorecen un estado productivo.
La oxidación o nitrosilación de tioles puede alterar ese centro, la unión del cofactor y la estabilidad del dímero. Describirlo como destrucción instantánea e irreversible de toda la enzima es excesivo: importan la modificación, el entorno y la recuperación. Un dímero intacto no demuestra por sí solo acoplamiento; algunos mecanismos de desacoplamiento no requieren monomerización.
PDB 1M9J contiene un dominio oxigenasa humano unido a clorzoxazona y 1M9K uno unido a 7-nitroindazol. Son constructos de dominio con ligando, no una representación dinámica de la enzima completa en un endotelio vivo. Informan sobre geometría local, pero no prueban estequiometría caveolar constante, una ruta obligatoria de disulfuros o la velocidad real de catálisis vascular.
Arginina, NOHA y oxígeno unido al hemo
El hemo férrico Fe³⁺ recibe un electrón y pasa a Fe²⁺, capaz de unir O₂. Fe²⁺–O₂ ↔ Fe³⁺–O₂•⁻ representa el carácter electrónico de un intermediario unido, no la liberación inmediata y obligatoria de superóxido libre.
La primera reacción produce Nω-hidroxi-L-arginina (NOHA); la segunda forma L-citrulina y NO. El nitrógeno experimenta una oxidación formal de cinco electrones, mientras el requerimiento externo neto corresponde a 1,5 NADPH por NO. No hay contradicción: oxígeno e intermediarios participan en el balance completo.
Una expresión bioquímica habitual del balance es:
Arg y Cit designan arginina y citrulina. La representación de protones depende de las convenciones ácido–base y describe el ciclo productivo total. La fuga aumenta NADPH y O₂ consumidos por unidad de NO. Los intermediarios de ambas etapas difieren; se han estudiado estados peroxo, hidroperoxo y oxoferrilo del hemo. Atribuir a las dos etapas un único Compound I inequívocamente establecido y una secuencia rígida de protonaciones sería demasiado categórico.
BH4 como cofactor redox
BH4 se encuentra cerca del hemo y contribuye a organizar el centro activo, unir sustrato y aportar un electrón a la química del oxígeno. Puede pasar por un estado radical y volver a reducirse durante la catálisis. Según la protonación, se describe como BH4•⁺ o un radical trihidrobiopterínico relacionado. Ese intermediario transitorio no equivale a BH2 acumulada, biopterina totalmente oxidada o una deficiencia clínica demostrada.
El cofactor favorece la reacción productiva del oxígeno unido en lugar de su salida prematura, pero no elimina toda fuga. Afinidad por arginina, distancias al hemo y vida del radical dependen del constructo y del método. Una reducción fija de Km de 100 a 2–5 µM no representa todos los estados de eNOS humana. BH4 también participa en hidroxilasas de aminoácidos aromáticos, cuyos ciclos y sistemas de regeneración difieren de NOS.
Fosforilación y acetilación: distinguir especies
Ser1177, Thr495, Ser615, Ser633 y Ser114 aparecen en la secuencia humana. Sus equivalentes bovinos habituales son Ser1179, Thr497, Ser617, Ser635 y Ser116. La numeración bovina no debe presentarse automáticamente como humana.
| Modificación | Función mecanística habitual | Límite |
|---|---|---|
| Fosforilación de Ser1177 | Akt y otras cinasas aumentan el flujo y facilitan actividad con menor señal de calcio | No implica independencia completa de CaM ni garantiza NO con BH4 insuficiente |
| Fosforilación de Thr495 | Suele limitar activación en la región de CaM; PKC es un regulador importante | Depende de sitios y estímulos combinados; no toda señal Gq inhibe eNOS |
| Ser615 y Ser633 | Regulación asociada con mayor actividad en varios modelos, con Akt, PKA o AMPK | Cada relación sitio–cinasa requiere evidencia; no hay multiplicador universal |
| Ser114 | Modificación oxigenasa dependiente del contexto | No puede atribuirse siempre a GSK-3β/p38 y un único efecto inhibidor |
| Desacetilación por SIRT1 | Regula la región de CaM y la producción de NO | Los modelos primarios no establecen una dosis terapéutica de activador SIRT1 |
Dimmeler (1999) demostró regulación dependiente de Akt; trabajos posteriores detallaron otros sitios. Más flujo electrónico beneficia cuando persiste el acoplamiento. Estimular una enzima desacoplada puede aumentar ROS. La cantidad de Ser1177 fosforilada no constituye una medida universal de salud endotelial.
Mattagajasingh (2007) estudió Lys496/Lys506 bovinas, correspondientes a Lys494/Lys504 humanas. Los equivalentes humanos pertinentes son Lys494/Lys504; la posición507 canónica no es lisina. La numeración específica de especie es esencial para interpretar SIRT1. El contexto se amplía en el artículo sobre SIRT1 y biodisponibilidad del resveratrol.
Caveolas, Golgi y complejos reguladores
La N-miristoilación de Gly2 y S-palmitoilación reversible de Cys15/Cys26 favorecen la localización de eNOS en membranas. Existen reservas en membrana plasmática, caveolas, Golgi y otros compartimentos. Calcio, sustrato y compañeros de señalización difieren; no toda la población sigue una ruta obligatoria después de cada estímulo.
Caveolina-1 suele limitar eNOS, mientras calmodulina y Hsp90 facilitan interacciones productivas. Hsp90 puede coordinar enzima y cinasas como Akt. Esto no demuestra un complejo Cav-1:eNOS invariable 1:1, desplazamiento completo de Cav-1 con cualquier flujo o traslado obligatorio al actina cortical. Caveolina también organiza la membrana, por lo que su déficit puede perjudicar vasos aunque libere una interacción inhibidora.
Biopterinas, química redox y rutas de desacoplamiento
Síntesis de novo y recuperación
GTP ciclohidrolasa I, codificada por GCH1, inicia la síntesis de BH4 formando dihidroneopterina trifosfato.6-Piruvoiltetrahidropterina sintasa (PTS) y sepiapterina reductasa participan después. Expresión, actividad, inflamación y demanda determinan el pool disponible; más transcripción de GCH1 no prueba por sí misma acoplamiento.
DHFR puede reducir 7,8-BH2 a BH4 utilizando NADPH. Esta recuperación difiere de la dihidropteridina reductasa DHPR/QDPR, que regenera dihidrobiopterina quinonoide en el ciclo de las hidroxilasas. La vía de sepiapterina también requiere reducción posterior, incluida DHFR. DHFR y DHPR no son nombres intercambiables.
La oxidación no sigue una única secuencia obligatoria BH4→BH2 quinonoide→7,8-BH2→biopterina en todas las condiciones. Radicales, reorganizaciones y oxidantes afectan productos. La capacidad de DHFR varía entre tejidos y especies y puede ser limitante. No toda oxidación endotelial es irreversible ni toda sepiapterina logra recuperación.
Cociente, cantidad absoluta y compartimento
BH2 puede ocupar sitios del cofactor sin sostener su química productiva. BH4/BH2 importa junto con la cantidad absoluta de BH4 respecto a eNOS. Un cociente favorable con poco cofactor no equivale a un pool suficiente; aumentar biopterinas totales puede representar sobre todo formas oxidadas.
Biopterina completamente oxidada y BH2 son diferentes y no deben tratarse como competidores idénticos. Los cocientes experimentales dependen de células, preparación y medición. Un intervalo normal 4–8, un cociente patológico 1:2 o un umbral diagnóstico 1,5 no son estándares clínicos universales. Plasma y pared vascular tampoco representan el mismo pool.
Fuga en oxigenasa y reductasa
Con cofactor o sustrato inadecuados, el oxígeno unido al hemo puede salir como superóxido, de forma esquemática:
Es una ruta conceptual, no todo el mecanismo cinético. El desacoplamiento no siempre se reduce a bloquear el segundo electrón o una velocidad universal 15–25 s⁻¹. Modificaciones reductasas generan otra fuga. Por ello, inhibidores NOS y retirada de calcio no suprimen necesariamente todas las ROS asociadas a eNOS de igual manera.
El superóxido tiene carga y difunde menos que NO. Importan producción local y competencia antioxidante; no entra automáticamente en un único pool subintimal. Membranas, citosol y orgánulos pueden comunicarse mediante oxidantes secundarios sin ser compartimentos químicamente idénticos.
NO, superóxido y peroxinitrito
La reacción es rápida:
La constante es del orden 10⁹–10¹⁰ M⁻¹s⁻¹ en condiciones experimentales pertinentes, próxima al límite de difusión, no superior al límite físico. La competencia con superóxido dismutasa depende también de concentraciones locales. Una comparación simplificada es:
Los corchetes representan concentraciones molares locales y k las constantes pertinentes. No describe toda la difusión, distribución enzimática o competencia intracelular. El artículo sobre SOD2 mitocondrial desarrolla la importancia del compartimento.
La protonación del peroxinitrito y su reacción con CO₂ originan otras especies. Oxidación y nitración pueden afectar lípidos, proteínas, BH4 y mitocondrias. La nitración experimental de Tyr34 de SOD2 ilustra una diana, no destrucción inevitable de todas las mitocondrias. Oxidación o pérdida del hemo de guanilato ciclasa soluble reduce sensibilidad a NO sin volver absolutamente ineficaces todos los donantes.
Retroalimentación con varias fuentes ROS
Oxidación de BH4, menor señal NO y más superóxido pueden reforzarse. eNOS coexiste con NADPH oxidasas, xantina oxidasa, mitocondrias y enzimas de células inflamatorias. Distribución y regulación difieren. NOX4 no reproduce automáticamente NOX1/NOX2: a menudo presenta efectos asociados a H₂O₂ y puede resultar protectora o perjudicial según contexto. No todas las NOX son fuentes equivalentes y siempre dañinas de superóxido.
S-glutationilación sin rotura obligatoria del dímero
Chen (2010) identificó S-glutationilación de Cys689/Cys908 reductasas humanas como vía de menor NO y mayor ROS; la numeración bovina difiere. Los disulfuros mixtos pueden formarse mediante glutatión oxidado o química de radicales tiol. No existe un único umbral GSH/GSSG universal que identifique la modificación.
La fuga reductasa puede responder a L-NAME o retirada de calcio de forma diferente a un mecanismo exclusivamente oxigenasa. No requiere que todos los dímeros se rompan. Glutarredoxina y tiorredoxina participan en recuperación experimental, pero no establecen un régimen clínico validado.
Reservas de arginina y paradoja de la arginina
Arginina extracelular, concentración intracelular total y sustrato accesible a un complejo localizado no son equivalentes. Transporte CAT-1 y ASS1/ASL pueden canalizar sustrato, contribuyendo a explicar cambios de NO tras añadir arginina aunque la concentración total supere Km. Esto no garantiza eficacia de suplementos en cualquier paciente.
Arginasa I es predominantemente citosólica y arginasa II mitocondrial; convierten arginina a ornitina y urea. La ornitina entra en vías de poliaminas y prolina. Capacidad, transporte y compartimentos importan más que una diferencia Km universal de 1000 veces o agotamiento fijo en todas las caveolas. Limitación de sustrato y oxidación del cofactor son problemas relacionados, pero distintos.
Inhibición por ADMA no equivale a desacoplamiento
Las metiltransferasas de arginina proteica de tipo I originan residuos asimétricamente metilados; la proteólisis libera ADMA. ADMA puede inhibir competitivamente NOS. Menos NO bajo inhibición no demuestra por sí solo fuga de electrones al oxígeno.
DDAH1 contribuye a hidrolizar ADMA; eliminación renal y metabolismo por AGXT2 también afectan su concentración. Ragavan (2023) no encontró apoyo para hidrólisis directa de ADMA por DDAH2 en los modelos bioquímicos y biológicos estudiados. Sus efectos vasculares no pueden explicarse automáticamente por esa reacción catalítica. Una posición como Cys274 en un constructo DDAH no debe trasladarse a proteína humana sin verificar especie y secuencia.
Señal NO y remodelado vascular
sGC–cGMP–PKG
NO se une al hemo de guanilato ciclasa soluble, modifica la coordinación hierro–histidina y activa conversión de GTP en cGMP y pirofosfato. cGMP activa proteína cinasa G; las fosfodiesterasas limitan duración y distribución. No se trata de un aumento ilimitado de cGMP ante cualquier NO.
Las rutas PKG afectan potencial de membrana, liberación/recaptación de calcio y sensibilidad contráctil. Contribuyen BKCa, IRAG/receptor IP₃, regulación SERCA y RhoA/ROCK–MYPT1–fosfatasa de miosina según preparación. Menos calcio reduce activación de cinasa de cadenas ligeras; más fosfatasa favorece relajación. No todo es inhibición directa de IP₃R o activación específica de SERCA2a. NO también regula plaquetas y procesos adicionales.
Inflamación, adhesión y retención lipídica
NO endotelial fisiológico suele limitar activación plaquetaria y adhesión leucocitaria. Nitrosilación experimental de componentes de NF-κB, como p50 o mecanismos asociados a IKK, modifica señales inflamatorias. Esto no vuelve todo NO antiinflamatorio: iNOS de alto rendimiento y el entorno oxidante pueden dar otros efectos.
NF-κB regula VCAM-1, ICAM-1 y quimiocinas. CCL2/CCR2, VLA-4/LFA-1, rodamiento, adhesión y diapédesis implican varios tipos celulares. No forman una única consecuencia lineal del desacoplamiento.
La retención arterial de lipoproteínas con apoB es un proceso aterogénico relevante. Agregación y modificaciones favorecen captación mediante CD36 y otros receptores scavenger. No requiere denudación endotelial para toda entrada, ni LDL oxidada es la única partícula inicial. Las células espumosas no proceden solo de fagocitosis desregulada por macrófagos M1: también contribuyen células derivadas del músculo liso.
Fenotipo muscular y cubierta fibrosa
El músculo liso cambia expresión de ACTA2, MYH11, CNN1 y TAGLN. SRF/miocardina y reguladores como KLF4 participan en transiciones. KLF4 no es una enzima desmetilasa de ADN. Existe un espectro de estados, incluidos productores de matriz que sostienen una cubierta fibrosa protectora, además de otros relacionados con inflamación, lípidos o calcificación.
Migración, matriz y programas osteogénicos RUNX dependen del entorno. No todo cambio fenotípico perjudica, ni restaurar eNOS revierte por sí solo todo el remodelado de placa.
ADN, mitocondrias y senescencia
Estrés oxidativo/nitrosativo puede dañar ADN y función mitocondrial. Activación intensa de PARP1 consume NAD⁺ y altera energía. La muerte no se limita a apoptosis caspasa-dependiente; puede incluir parthanatos asociado a PARP y otras rutas.
Relaciones experimentales entre NO, telomerasa/TERT y supervivencia no prueban protección telomérica o rejuvenecimiento universal. SASP puede incluir IL-6, IL-8 y PAI-1, pero composición y causas varían. Las llamadas células progenitoras endoteliales son heterogéneas: CD34/CD133/VEGFR2 pueden incluir células hematopoyéticas proangiogénicas y no equivalen automáticamente a células formadoras de colonias endoteliales. Un ensayo circulante no demuestra caída universal del 70–80% de reparación endotelial verdadera.
Rigidez arterial: tono, geometría y matriz
La rigidez integra tono muscular, geometría, citoesqueleto, matriz extracelular y presión de distensión. NO afecta su componente funcional; elastina, colágeno y calcificación aportan cambios estructurales duraderos. Edad, enfermedad renal e hipertensión intervienen por varias vías, sin una atribución exclusiva al desacoplamiento.
Elastina, proteasas y colágeno
Gran parte de la elastina arterial se deposita al inicio de la vida y se renueva lentamente. Inflamación y ambiente redox afectan MMP-2, MMP-9, MMP-12 y otras proteasas. La modificación del interruptor de cisteína del prodominio cambia actividad, pero oxidantes pueden activar o inactivar metaloproteinasas según condiciones. Fragmentación de elastina y transferencia de carga al colágeno conectan biología y mecánica sin demostrar una cascada MMP obligatoria y exclusiva de eNOS.
Músculo liso y fibroblastos adventiciales regulan colágeno I/III, fibronectina y otros componentes mediante TGF-β y señales mecánicas. Lisil oxidasa (LOX), dependiente de cobre, desamina oxidativamente lisina/hidroxilisina y facilita enlaces enzimáticos. LOX no es el receptor lipoproteico LOX-1. También madura elastina fisiológicamente; no toda su actividad supone endurecimiento patológico.
Azúcares y dicarbonilos forman productos de glicación avanzada (AGEs). Glucosepano y pentosidina incluyen productos de entrecruzamiento. Nε-Carboximetillisina (CML) es un aducto y marcador importante, no una unión intermolecular por sí misma. RAGE conecta ciertas exposiciones AGE con inflamación y oxidación; los productos difieren en afinidad y función mecánica.
Los módulos de fibrillas aisladas no equivalen al módulo efectivo de una arteria viva multicapa. No corresponde introducir valores arbitrarios de 100–1000 MPa del colágeno en una fórmula clínica de onda. Reclutamiento no lineal de fibras y presión de medición cambian la respuesta.
Ondas y modelos idealizados
La aorta almacena parte de la eyección sistólica como energía elástica y la devuelve en diástole. La fracción depende de hemodinámica; 50% del volumen sistólico es ilustrativo, no constante universal. Velocidad de onda de presión y velocidad de sangre son diferentes.
Para un tubo elástico de pared delgada, Moens–Korteweg aproxima:
c es velocidad de onda, Einc módulo incremental en la distensión actual, h espesor, R radio y ρ densidad del líquido. La geometría es idealizada. Restricción, espesor finito, viscoelasticidad y heterogeneidad requieren modificaciones.
Bramwell–Hill relaciona velocidad y distensibilidad volumétrica:
V es volumen y P presión. dV/dP es complianza absoluta; DV distensibilidad relativa. No se deben nombrar como una misma magnitud sin unidades. Ambos modelos expresan relaciones próximas, no identidades exactas para cualquier aorta.
Mayor rigidez suele acelerar ondas. Las reflexiones se distribuyen por cambios de impedancia, geometría y pared, sin una única localización arteriolar. Pueden aumentar carga telesistólica, pero presión central depende también de onda directa, eyección, talla, frecuencia y distribución de reflejos. En jóvenes, la onda reflejada no coincide obligatoriamente con el cierre valvular; AIx no mide rigidez pura.
Corazón, riñones, cerebro y retina
Presión de pulso es sistólica menos diastólica. Una aorta rígida puede acompañarse de hipertensión sistólica aislada, mayor poscarga, hipertrofia y disfunción diastólica ventricular. Menor presión diastólica perjudica perfusión coronaria en ciertas condiciones. El flujo coronario no es exclusivamente diastólico en ambas arterias: ese predominio importa especialmente al ventrículo izquierdo y varía regionalmente.
Mayor pulsación puede transmitirse a territorios de baja resistencia. Glomérulos, vasos cerebrales pequeños y retina responden a presión, pulsatilidad y autorregulación. Albuminuria, deterioro renal, lesiones de sustancia blanca, lagunas y cambios retinianos son asociaciones relevantes, no un daño hidráulico inevitable definido por eNOS. Barreras y enfermedades concomitantes influyen.
Qué miden las pruebas vasculares
FMD: respuesta funcional
FMD cuantifica cambio del diámetro braquial tras hiperemia reactiva. Muchos protocolos emplean cinco minutos de oclusión del antebrazo y ecografía de alta frecuencia con seguimiento del diámetro. Preparación, manguito, flujo y búsqueda del máximo requieren estandarización. Esta explicación metodológica no es una instrucción para inducir isquemia por cuenta propia.
Dbase es diámetro basal y Dpeak el máximo en una ventana protocolizada.4,00→4,24 mm corresponde al6%. El máximo no aparece siempre a 60–90 segundos; un instante fijo sesga resultados. Diámetro inicial, estímulo de cizallamiento, alimentación, tabaco, fármacos, hora y técnica importan.
Thijssen (2019) enfatiza estandarización. FMD refleja función dependiente de endotelio con componente NO importante, pero no producción basal o proporción desacoplada directa. Un umbral 6,5–7% no confirma el mecanismo en cualquier población. La respuesta a un donante NO puede evaluar músculo liso, dentro de un protocolo clínico apropiado; no se fija una norma universal NMD>15–20%.
Inaba (2010) relacionó mayor FMD y menos eventos en cohortes observacionales. La asociación por punto porcentual no promete prevención causal al elevar FMD con un suplemento. El artículo se publicó en International Journal of Cardiovascular Imaging.
Tonometría digital y aumento de presión
La tonometría periférica registra cambios del pulso en dedos tras oclusión. RHI combina cociente posterior/basal del lado estudiado, normalización al control y algoritmo del dispositivo. Reduce parte de la dependencia del operador, pero temperatura, tono simpático, señal basal y calidad siguen influyendo. Microvasos digitales y arteria braquial no son intercambiables ni igualmente dependientes de NO.
RHI 1,67 o 2,10 aparecen en clasificaciones instrumentales o estudios; no diagnostican desacoplamiento ni dictan tratamiento universal. Para una onda de presión definida:
AP es presión de aumento, PP presión de pulso, P1/P2 puntos del algoritmo. Un índice digital propietario no equivale automáticamente a AIx aórtico central. Normalización a 75 latidos/min controla una influencia, no edad, talla, sexo, tono periférico o patrón de eyección. No se justifican límites sexuales universales para diagnosticar el mecanismo.
Velocidad carotidofemoral
cfPWV evalúa rigidez regional de una ruta principalmente aórtica. Se mide retraso entre inicios de onda y distancia según método validado:
Deff está en metros y Δt en segundos, dando m/s.0,60 m/0,060 s=10 m/s. El factor 0,8 de distancia directa pertenece a ciertos métodos estandarizados, no a todos los dispositivos y anatomías.
Edad y presión actual afectan cfPWV. Cerca de 10 m/s se usa en algunas clasificaciones de rigidez/daño subclínico con método adecuado; no es un umbral bioquímico eNOS ni duplica inevitablemente riesgo individual. Mitchell y Ben-Shlomo demostraron asociaciones pronósticas en cohortes y datos combinados. Predicción adicional difiere de beneficio probado por tratar un número.
Biopterinas y marcadores redox
BH4 se oxida fácilmente durante preparación. Investigación analítica requiere recogida, estabilización, almacenamiento y separación/detección validados. HPLC electroquímica/fluorescente y LC-MS/MS responden a tareas distintas. Estabilizante y temperatura deben ajustarse al laboratorio, no a una receta universal.
Antoniades (2007) encontró relaciones diferentes de biopterinas plasmáticas y vasculares con función e inflamación. Plasma no revela directamente cada bolsillo pteridínico de eNOS. Pueden definirse:
Son índices analíticos adimensionales con denominadores distintos, no índices clínicos validados e intercambiables. Un valor bajo apoya una hipótesis sobre el pool, sin identificar fuente ROS, localización o dosis.
3-Nitrotirosina señala nitración, también producida por mieloperoxidasa/nitrito y no solo peroxinitrito. Analitos libres o unidos, LC-MS y ELISA no comparten un único intervalo. MDA y F₂-isoprostanos reflejan oxidación lipídica dependiente de muestra, metabolismo y método, no específica de eNOS. ADMA y Arg/ADMA describen entorno inhibidor/sustrato y metabolismo renal, sin diagnóstico inequívoco.
| Medida | Información principal | Límite para atribuir desacoplamiento |
|---|---|---|
| FMD | Reactividad de arteria grande al flujo | Estímulo, diámetro y múltiples rutas |
| RHI | Reactividad microvascular digital | Algoritmo, tono simpático, especificidad limitada |
| cfPWV | Onda aórtica y rigidez regional | Edad, presión, geometría, matriz, tono |
| BH4/BH2 | Composición redox del pool muestreado | Plasma difiere del sitio intracelular |
| ADMA y Arg/ADMA | Balance inhibidor/sustrato | Inhibición no equivale a fuga de oxígeno |
| 3-Nitrotirosina | Química nitrante | Diversas rutas y formas analíticas |
| MDA/F₂-isoprostanos | Oxidación lipídica | No identifican enzima de origen |
| sVCAM-1 | Activación inflamatoria/endotelial | Varias fuentes y señales |
| Endotelina-1 | Un circuito vasoactivo | Plasma no equivale a tono local o eNOS |
La combinación de NO/citrulina, ROS químicamente específicas, pteridinas, modificaciones y respuesta a intervenciones dirigidas es más sólida que un marcador aislado. SDS a baja temperatura para dímero/monómero tiene límites. Fluorescencia DHE sin separar productos no cuantifica superóxido específicamente. Sensibilidad a L-NAME no cubre toda fuga reductasa; hacen falta controles de origen y especificidad.
Recuperar acoplamiento: mecanismo y evidencia clínica
BH4 y folatos
Sapropterina es BH4 farmacológica con indicaciones, especialmente fenilcetonuria sensible a BH4. No supone aprobación para cualquier cfPWV alta o FMD baja. Stroes y Heitzer observaron mejor respuesta vascular con BH4 local en determinadas circunstancias. Experimentos locales, FMD y otros métodos, y tratamiento oral prolongado son distintos.
En el ensayo aleatorizado coronario de Cunnington (2012), BH4 oral aumentó biopterinas totales sin mejora esperada de función o ambiente redox vascular. Oxidación y distribución explicaban limitaciones. Esto no establece biodisponibilidad universal inferior al 8–10%, pero subraya BH2, tejido diana y resultado funcional.
Antoniades (2006) estudió 5-metiltetrahidrofolato (5-MTHF) en vasos humanos y durante administración a pacientes de bypass coronario. Disminuyó señal superóxido y mejoraron disponibilidad BH4 y función. No valida un régimen oral prolongado universal de 5–10 mg/día para todo paciente coronario. 5-MTHF no es un sustituto probado de BH4 en el bolsillo pteridínico, ni unión/estabilización directa de DHFR explica universalmente cualquier efecto de folatos.
Ácido fólico, formas reducidas, DHFR y metabolismo de un carbono se relacionan sin ser intercambiables. Deficiencia, homocisteína, variables subrogadas y prevención de eventos requieren evidencias separadas. No se deriva una dosis preventiva de metilfolato desde un cociente plasmático o una respuesta aguda ex vivo.
Arginina y citrulina
Arginina oral sufre metabolismo intestinal/hepático y limitaciones de transporte/arginasa. Pérdida fija del 60–70% específicamente hepática no es constante universal. Citrulina no es sustrato arginasa y evita gran parte de ese consumo presistémico; conversión renal ASS1/ASL aumenta arginina. El ciclo intracelular también abastece NOS.
Schwedhelm (2008) caracterizó farmacocinética. Más arginina plasmática no garantiza menos fuga, reducción duradera cfPWV o prevención de infarto. Citrulina no es alternativa impecable para cualquier diagnóstico; esa investigación no demostró inhibición alostérica directa de arginasa vascular clínicamente relevante con dosis ordinarias.
En el estudio cruzado de una semana de Schwedhelm con 20 participantes sanos, ningún régimen mejoró la FMD respecto al valor basal. Un cambio farmacocinético y una mejora funcional vascular son desenlaces distintos.
VINTAGE MI (Schulman,2006) incluyó 153 pacientes tras primer STEMI con arginina o placebo además de tratamiento habitual. No mejoraron rigidez ni fracción de eyección; murieron seis del grupo arginina frente a cero y el ensayo se cerró por seguridad. No demuestra daño de cualquier exposición en toda persona, pero impide recomendar arginina tras infarto agudo o asumir seguridad por ser metabolito normal.
Ascorbato, tocoferol y polifenoles
Ascorbato puede reducir intermediarios radicales pteridínicos. α-Tocoferol frena cadenas lipídicas; interacciones entre fases acuosa y lipídica tienen fundamento químico. Potenciales dependen de par, pH y condiciones: una cifra no prueba sinergia terapéutica humana.
Vitamina C mejoró respuestas en ciertos experimentos. No demuestra que toda dosis alta C/E actúe solo mediante eNOS o prevenga eventos. Concentración intravenosa, alimentación y suplemento oral difieren; no reproducen automáticamente cultivos o infusiones. No se deduce un régimen preventivo universal.
Resveratrol se relaciona con SIRT1, AMPK, FOXO y programas antioxidantes en células/animales, sin activación directa igualmente específica en todos los ensayos. EGCG se estudia en PI3K/Akt/eNOS, receptores y redox; antocianinas/proantocianidinas en expresión e inflamación. Una ruta única 67LR–Fyn, estabilización universal NOS3 3′-UTR o supresión obligatoria miR-155 requiere comprobar compuesto y modelo.
Un efecto molecular no establece absorción, eficacia prolongada o seguridad de extractos combinados. No se presenta un complejo resveratrol/pterostilbeno, OPC y EGCG como algoritmo validado. Dieta y concentraciones farmacológicas deben distinguirse.
Fármacos con indicaciones
Estatinas reducen mevalonato e isoprenoides para prenilar GTPasas. RhoA/ROCK, estabilidad NOS3, Akt y biopterinas participan en efectos experimentales. No explican toda la utilidad clínica: bajar lipoproteínas apoB tiene evidencia independiente. No hace falta una multiplicación universal del ARNm o eliminar directamente toda fosforilación Thr495.
Inhibidores ECA y bloqueadores AT1 reducen angiotensina y pueden limitar estrés NOX; los primeros modifican bradicinina. Angiotensina II no es el único estímulo oxidante. La elección clínica no deriva de una flecha eNOS ni de preferir universalmente telmisartán por PPARγ.
Inhibidores SGLT2 y agonistas GLP-1R tienen resultados clínicos en poblaciones definidas. Peso, hemodinámica, riñón, metabolismo e inflamación interactúan con endotelio. NHE1, AMPK/SIRT1 y señal GLP-1R directa siguen siendo explicaciones contextuales; receptores vasculares funcionales no se distribuyen uniformemente. No toda la utilidad es un reacoplamiento eNOS directo demostrado.
La intensidad de estatinas depende de fármaco y dosis. Selección, condiciones concomitantes y seguimiento clínico son necesarios; una descripción mecanística no sustituye prescripción.
| Enfoque | Apoyo mecanístico | Límite de transferencia |
|---|---|---|
| BH4 local | Mejor respuesta NO en experiencias seleccionadas | No equivale a tratamiento oral o eventos |
| BH4 oral | Pool influido por oxidación/distribución | Ensayo coronario sin beneficio funcional esperado |
| 5-MTHF | Tejido humano, BH4/ROS y función | No sustituto universal ni protocolo de dosis validado |
| Arginina/citrulina | Metabolismo y farmacocinética | Variables subrogadas heterogéneas; señal postinfarto VINTAGE MI |
| C/E y polifenoles | Química redox y modelos | Concentración/resultado subrogado no prueba sinergia clínica |
| Estatinas/bloqueo RAS | Indicaciones y mecanismos | eNOS no es mediador único |
| SGLT2/GLP-1R | Resultados en poblaciones pertinentes | No atribución directa a toda clase/tejido |
| Actividad física | Adaptaciones hemodinámicas/metabólicas | Sin dosis shear o cambio FMD/cfPWV garantizado |
Flujo, hábitos y reloj biológico
Cizallamiento se transmite por glucocálix, membrana, integrinas, complejos PECAM-1/VE-cadherina/VEGFR, canales y citoesqueleto. PI3K/Akt, KLF2/KLF4, SIRT1 y otros programas favorecen NOS3, barrera y menor adhesión bajo flujo direccional sostenido. Flujo oscilatorio y bifurcaciones cambian la señal. Glucocálix y sensores intercelulares no forman una única estructura estrictamente caveolar.
Ejercicio modifica además presión, tono autónomo, sensibilidad a insulina e inflamación. Mejoras FMD y rigidez son heterogéneas. No se prometen 2–4 puntos FMD y 0,8–1,5 m/s menos cfPWV en ocho semanas a todos, ni se prescribe por un umbral endotelial normalmente no medido así.
Dieta, tabaco, sueño, peso, lípidos, presión y glucemia actúan por varias vías. HbA1c<6–6,5% universal para supuesto desacoplamiento no se justifica: diagnóstico, tratamiento y riesgo de hipoglucemia modifican metas. Alimentación no implica dosis obligatorias altas de omega-3 o concentrados polifenólicos para una enzima.
BMAL1/CLOCK/PER participan en ritmos vasculares. Hora, sueño y hemodinámica matinal afectan mediciones; eventos matinales son multifactoriales, no simple caída universal de eNOS entre 06:00–09:00. Debe considerarse horario en comparaciones.
No se deduce trasladar todos los antihipertensivos a la noche. TIME (2022) no mostró ventaja vespertina en su resultado cardiovascular principal. Prescripción, tolerancia, adherencia y perfil de presión determinan horario. Cronoterapia universal de suplementos para reacoplar antes del amanecer no está demostrada.
Interpretar sin un algoritmo terapéutico falso
FMD baja, cfPWV alta y ADMA elevada reflejan componentes distintos del riesgo. Combinarlos, o añadir BH4/BH2 plasmático, no establece diagnóstico molecular con un complejo de suplementos en cuatro etapas. Prioridad práctica: factores clínicos reales e intervenciones con indicaciones y resultados pertinentes. Reacoplamiento experimental requiere diseño adecuado.
Una afirmación mecanística necesita compartimento, química de señal, identificación de fuente y controles alternativos. Una afirmación clínica distingue variables subrogadas de eventos y especifica población, duración y efectos adversos. Esto preserva valor científico sin precisión ficticia.
Método y límites
Artículo narrativo preparado el 8 de octubre de 2026 con comprobaciones dirigidas de registros estructurales primarios, secuencia humana NOS3 y estudios mecanísticos/clínicos seleccionados. Se utilizaron registros y resúmenes primarios accesibles; algunos textos completos no estaban disponibles. Especie, compartimento, especificidad analítica y población condicionan interpretación.
No se realizó revisión sistemática, auditoría independiente de toda la literatura, análisis individual, evaluación GRADE, revisión externa, experimentos propios o validación clínica de un panel. Persisten incertidumbres sobre contribución de fuentes ROS, pools tisulares BH4 y resultados clínicos prolongados del reacoplamiento.
Preguntas frecuentes
¿Siempre se rompe el dímero?
No. Alteración del cofactor y fuga reductasa pueden aparecer con organización dimérica conservada.
¿FMD baja confirma desacoplamiento?
Refleja reactividad vascular influida por varias vías; no mide directamente el estado enzimático.
¿El cociente plasmático equivale al vascular?
No. Compartimento y preparación importan; no hay un umbral diagnóstico universal.
¿Citrulina o BH4 garantizan beneficio clínico?
No. Farmacocinética y modelos no establecen eficacia y seguridad prolongadas en toda población.
¿Todos deben tomar antihipertensivos de noche?
No. TIME no mostró ventaja general en el resultado principal; horario depende de prescripción y tolerancia.
Fuentes
- Förstermann & Sessa (2012). Nitric oxide synthases: regulation and function. Eur Heart J.
- Sessa (2004). eNOS at a glance. J Cell Sci. DOI:10.1242/jcs.01165
- UniProt P29474: human NOS3 canonical sequence and annotation.
- RCSB PDB 1M9J: human endothelial nitric oxide synthase oxygenase domain with chlorzoxazone.
- RCSB PDB 1M9K: human endothelial nitric oxide synthase oxygenase domain with 7-nitroindazole.
- Mattagajasingh et al. (2007). SIRT1 promotes endothelium-dependent vascular relaxation by activating endothelial nitric oxide synthase. PNAS.
- Dimmeler et al. (1999). Activation of nitric oxide synthase in endothelial cells by Akt-dependent phosphorylation. Nature.
- AMP-Activated Protein Kinase Functionally Phosphorylates Endothelial Nitric Oxide Synthase Ser633 (2009). Circ Res.
- Crabtree et al. (2009). Critical role for tetrahydrobiopterin recycling by dihydrofolate reductase in regulation of endothelial nitric-oxide synthase coupling: relative importance of the de novo biopterin synthesis versus salvage pathways. J Biol Chem.
- Crabtree et al. (2008). Ratio of 5,6,7,8-tetrahydrobiopterin to 7,8-dihydrobiopterin in endothelial cells determines glucose-elicited changes in NO vs. superoxide production by eNOS. Am J Physiol Heart Circ Physiol.
- Chen et al. (2010). S-glutathionylation uncouples eNOS and regulates its cellular and vascular function. Nature.
- Redox modulation of endothelial nitric oxide synthase by glutaredoxin-1 through reversible oxidative post-translational modification (2013).
- Ragavan et al. (2023). DDAH2 does not metabolize methylarginines. Nature Communications. DOI:10.1038/s41467-023-38467-9
- Pacher et al. (2007). Nitric oxide and peroxynitrite in health and disease. Physiological Reviews.
- Interactions of Peroxynitrite, Tetrahydrobiopterin, Ascorbic Acid, and Thiols: Implications for Uncoupling Endothelial Nitric-oxide Synthase. J Biol Chem. DOI:10.1074/jbc.M302227200
- Schröder et al. (2012). Nox4 is a protective reactive oxygen species generating vascular NADPH oxidase. Circ Res.
- Shankman et al. (2015). KLF4-dependent phenotypic modulation of smooth muscle cells has a key role in atherosclerotic plaque pathogenesis. Nature Medicine.
- Lacolley et al. (2017). Vascular Smooth Muscle Cells and Arterial Stiffening: Relevance in Development, Aging, and Disease. Physiological Reviews.
- Sell et al. (2005). Glucosepane is a major protein cross-link of the senescent human extracellular matrix. Relationship with diabetes. J Biol Chem.
- Thijssen et al. (2019). Expert consensus and evidence-based recommendations for the assessment of flow-mediated dilation in humans. Eur Heart J.
- Van Bortel et al. (2012). Expert consensus document on the measurement of aortic stiffness in daily practice using carotid-femoral pulse wave velocity. J Hypertens.
- Inaba et al. (2010). Prediction of future cardiovascular outcomes by flow-mediated vasodilatation of brachial artery: a meta-analysis. Int J Cardiovasc Imaging.
- Ben-Shlomo et al. (2014). Aortic pulse wave velocity improves cardiovascular event prediction: an individual participant meta-analysis of prospective observational data from 17,635 subjects. JACC.
- Mitchell et al. (2010). Arterial stiffness and cardiovascular events: the Framingham Heart Study. Circulation.
- Hamburg et al. (2008). Cross-sectional relations of digital vascular function to cardiovascular risk factors in the Framingham Heart Study. Circulation.
- Antoniades et al. (2007). Altered plasma versus vascular biopterins in human atherosclerosis reveal relationships between endothelial nitric oxide synthase coupling, endothelial function, and inflammation. Circulation.
- Stroes et al. (1997). Tetrahydrobiopterin restores endothelial function in hypercholesterolemia. J Clin Invest.
- Heitzer et al. (2000). Tetrahydrobiopterin improves endothelium-dependent vasodilation in chronic smokers: evidence for a dysfunctional nitric oxide synthase. Circ Res.
- Cunnington et al. (2012). Systemic and Vascular Oxidation Limits the Efficacy of Oral Tetrahydrobiopterin Treatment in Patients With Coronary Artery Disease. Circulation.
- Antoniades et al. (2006). 5-Methyltetrahydrofolate Rapidly Improves Endothelial Function and Decreases Superoxide Production in Human Vessels: Effects on Vascular Tetrahydrobiopterin Availability and Endothelial Nitric Oxide Synthase Coupling. Circulation.
- Schwedhelm et al. (2008). Pharmacokinetic and pharmacodynamic properties of oral L-citrulline and L-arginine: impact on nitric oxide metabolism. Br J Clin Pharmacol.
- Schulman et al. (2006). L-arginine therapy in acute myocardial infarction: the Vascular Interaction With Age in Myocardial Infarction (VINTAGE MI) randomized clinical trial. JAMA.
- Mackenzie et al. (2022). Cardiovascular outcomes in adults with hypertension with evening versus morning dosing of usual antihypertensives in the UK (TIME study): a prospective, randomised, open-label, blinded-endpoint clinical trial. Lancet.