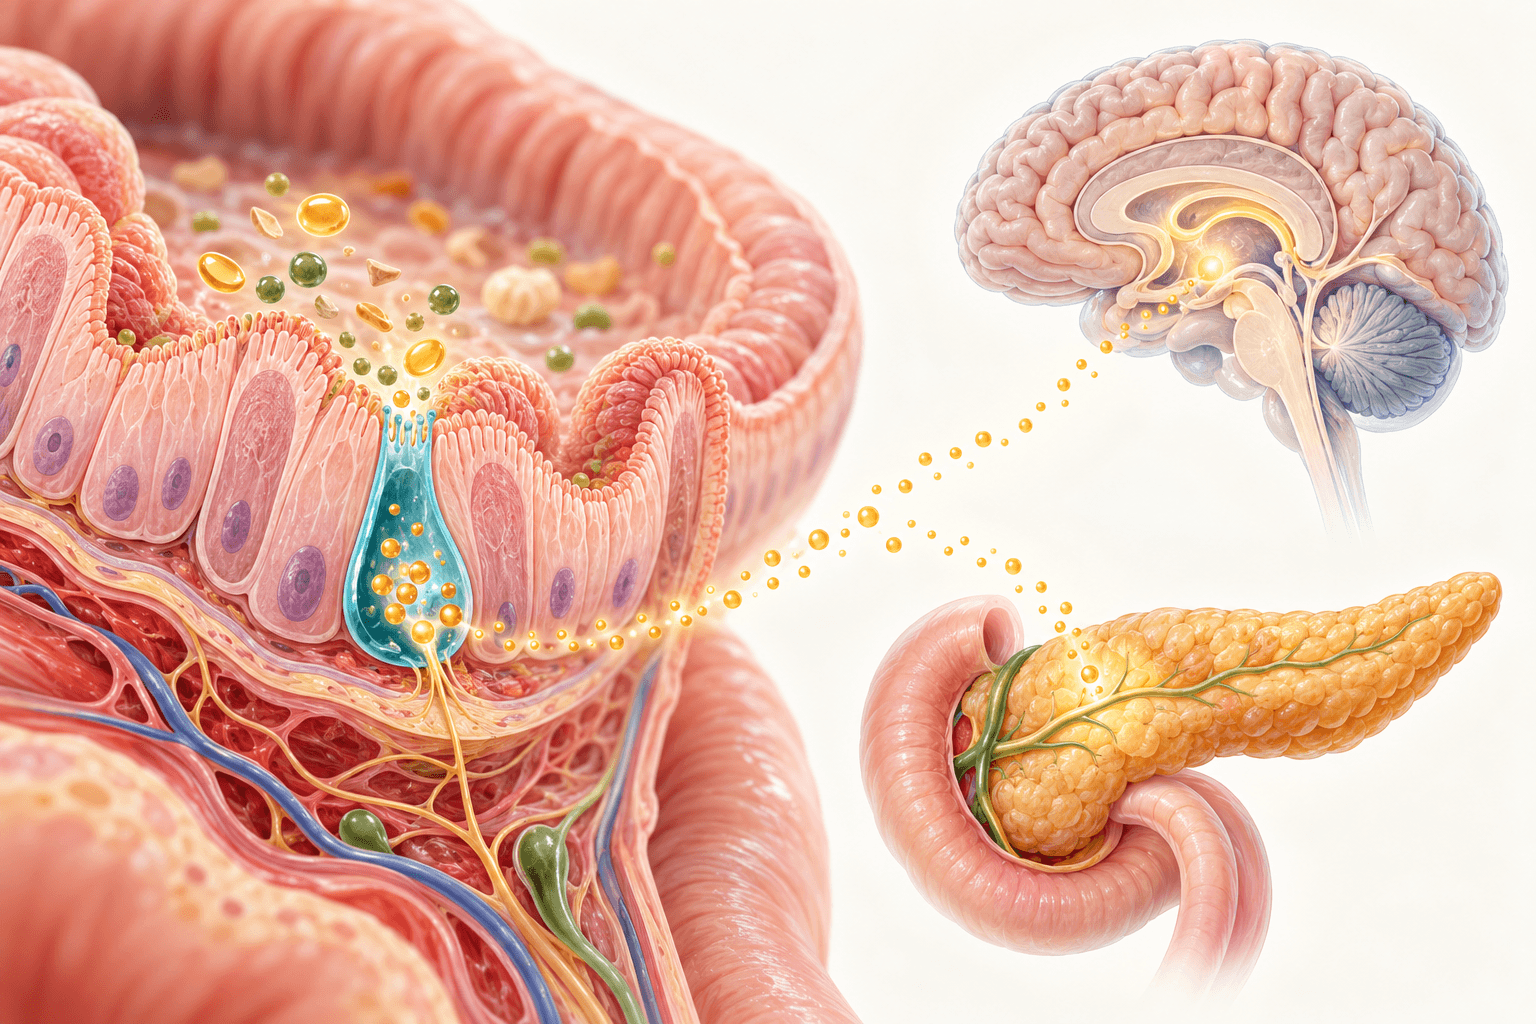
GLP-1: распознавание нутриентов, DPP-4 и система кишечник–мозг
Процессинг проглюкагона, GLP-1R, глюкозозависимая секреция инсулина, DPP-4 и нутриентные сенсоры L-клеток. Мозговые цепи, испытания и границы пищевых стратегий.
Процессинг проглюкагона, GLP-1R, глюкозозависимая секреция инсулина, DPP-4 и нутриентные сенсоры L-клеток. Мозговые цепи, испытания и границы пищевых стратегий.
Глюкагоноподобный пептид-1 связывает поступление пищи в кишечник с секрецией инсулина, моторикой желудка и потреблением энергии. Его действие помогает объяснить, почему пероральная глюкоза вызывает более выраженный инсулиновый ответ, чем внутривенная глюкоза при одинаковой гликемии. Отсюда интерес к продуктам, стимулирующим энтероэндокринные L-клетки. Однако кратковременный подъём собственного GLP-1 после еды не воспроизводит длительную экспозицию агонистов рецептора и сам по себе не доказывает сопоставимого снижения веса или защиты от заболеваний.
Ген GCG человека расположен в области 2q24.2 и кодирует препроглюкагон. После удаления сигнального пептида остаётся проглюкагон, обычно описываемый как цепь из 160 аминокислот; это не длина полного первичного продукта трансляции. Модульная организация экзонов объединяет последовательности нескольких родственных пептидов. Для точных границ экзонов, длины транскрипта и позиций расщепления необходимы конкретный транскрипт и система нумерации: универсальная схема из шести одинаковых блоков создаёт ложную определённость.
В обычном пути панкреатических α-клеток преобладает прогормонконвертаза PC2, кодируемая PCSK2. Образуются глюкагон и глюкагонсвязанный панкреатический полипептид; последовательности GLP сохраняются в крупном C-концевом фрагменте MPGF. В кишечных L-клетках и проглюкагоновых нейронах ствола мозга PC1/3, продукт PCSK1, обеспечивает образование GLP-1, GLP-2 и других производных. Глицентин и оксинтомодулин содержат последовательность глюкагона внутри более длинных цепей. Оксинтомодулин биологически активен, поэтому представление о простом «заблокированном глюкагоне» неверно. При повреждении или метаболическом стрессе процессинг α-клеток может изменяться; тканевая специализация является преобладающим паттерном, а не абсолютным запретом.
Основные активные нативные формы — GLP-1(7–36)амид и GLP-1(7–37), соответственно 30 и 31 аминокислота. Нумерация относится к сегменту GLP-1, а не ко всему препроглюкагону. N-концевой гистидин важен для активации рецептора. GLP-1(1–37) значительно слабее в обычном инкретиновом действии; описание созревания как единственного обязательного шага с неопределённым ферментом скрывает специфичность процессинга.
Пептидилглицин-α-амидирующая монооксигеназа PAM превращает глицин-удлинённый пептид в амидированный. Гидроксилирующая и лиазная активности используют кислород, медь и восстановительные эквиваленты аскорбата; выделяется глиоксилат. Это схема созревания, а не полностью сбалансированное химическое уравнение:
Во многих измерениях у человека амидированная форма составляет около четырёх пятых активного пула, но доля зависит от метода и отбора проб. Обе формы активируют GLP-1R; преобладание не доказывает клинического превосходства одной формы. Общая физиология процессинга рассмотрена у Drucker (2006), Holst (2007), Baggio и Drucker (2007).
GLP-1R относится к GPCR класса B1. Он включает внеклеточный N-концевой домен, семь трансмембранных спиралей, петли и цитоплазматическую C-концевую область. В двухдоменной модели C-концевая часть пептида взаимодействует с внеклеточным доменом, а N-концевая — с трансмембранным ядром. Активная конформация сопровождается смещением внутриклеточной части TM6 наружу, создающим место для Gs. Это взаимодействия распознавания, а не каталитический активный центр пептида.
Структурные идентификаторы требуют проверки. Комплекс Zhang и соавторов 2017 года, PDB 5VAI, содержит рецептор кролика и компоненты нескольких видов. PDB 6B3J — комплекс человеческого GLP-1R–Gs с пептидным агонистом, имеющим смещённую сигнализацию; PDB 6ORV содержит непептидный TT-OAD2. Это не три взаимозаменяемых структуры нативного человеческого GLP-1. Контакты отдельных остатков, расстояния смещения и «ионные замки» относятся к определённому конструкту и сравнению. Работа Liang 2017 года о другом рецепторе класса B не заменяет структуру GLP-1R.
Активация рецептора способствует обмену GDP на GTP в Gαs и активации аденилатциклазы. Из ATP образуются циклический AMP и пирофосфат:
cAMP активирует PKA и фактор обмена Epac2, кодируемый RAPGEF4. PKA регулирует ионные каналы, белки экзоцитоза и транскрипционные ответы, включая фосфорилирование CREB. Epac2 активирует Rap1 и участвует в привлечении и подготовке гранул вместе с RIM2, Piccolo, Rab3 и Munc13. В отдельных экспериментальных условиях участвуют PLCε и высвобождение внутриклеточного кальция. Повышается секреторная готовность; кальций не становится ненужным.
GRK и β-аррестины регулируют десенситизацию, интернализацию и транспорт рецептора. Аррестины могут организовывать дополнительные сигналы, включая ERK, однако интернализация не обязательно прекращает всю Gs-сигнализацию: важны эндосомальные сигналы и свойства лиганда. Универсальная последовательность «аррестин связался — весь cAMP исчез — независимо включился Akt» чрезмерно упрощает процесс.
В 1964 году McIntyre и коллеги, а также Elrick и коллеги независимо показали различия инсулинового ответа на пероральную и внутривенную глюкозу. В современном сопоставлении скорость внутривенного введения подбирают для воспроизведения перорального профиля глюкозы. Одна фиксированная скорость не гарантирует изогликемического сравнения. При сопоставимых площадях под кривой инсулина или C-пептида:
AUC — площадь за определённый интервал; в обоих исследованиях должны совпадать анализируемый показатель и способ учёта исходного уровня. Знаменатель — пероральная AUC, поэтому двукратный ответ соответствует 50%, а не 200%. Значения около 50–70% встречаются у здоровых людей при подходящих условиях, но зависят от нагрузки и протокола. Участвуют GLP-1 и глюкозозависимый инсулинотропный полипептид GIP. K-клетки GIP преимущественно проксимальные, L-клетки встречаются по всему кишечнику с дистальным обогащением. При диабете 2-го типа эффект часто снижается вследствие нарушенной чувствительности β-клеток, особенно к GIP, и других изменений. Это не всегда дефицит секреции GLP-1 и не единый порог ниже 20%.
Захват глюкозы и метаболизм с участием глюкокиназы повышают отношение ATP/ADP. Человеческие β-клетки отличаются от привычной модели грызунов с GLUT2: существенны GLUT1/GLUT3. Глюкокиназа имеет EC 2.7.1.2, а не EC 2.7.1.1 обычной гексокиназы. Закрываются ATP-чувствительные калиевые каналы Kir6.2/SUR1, уменьшается калиевая проводимость, мембрана деполяризуется и открываются потенциалзависимые кальциевые каналы. Вклад типов каналов и значения потенциала зависят от вида и препарата клеток.
GLP-1R–cAMP усиливает этот поддерживаемый глюкозой процесс. PKA и Epac2 меняют кальциевую чувствительность и доступность гранул. Готовый к высвобождению и резервный пулы помогают объяснить раннюю и продолжительную фазы секреции. Участвуют SNARE-белки syntaxin, SNAP-25 и VAMP2, кальциевые сенсоры, включая synaptotagmin, и белки подготовки гранул; каждый предложенный контакт не обязательно универсален.
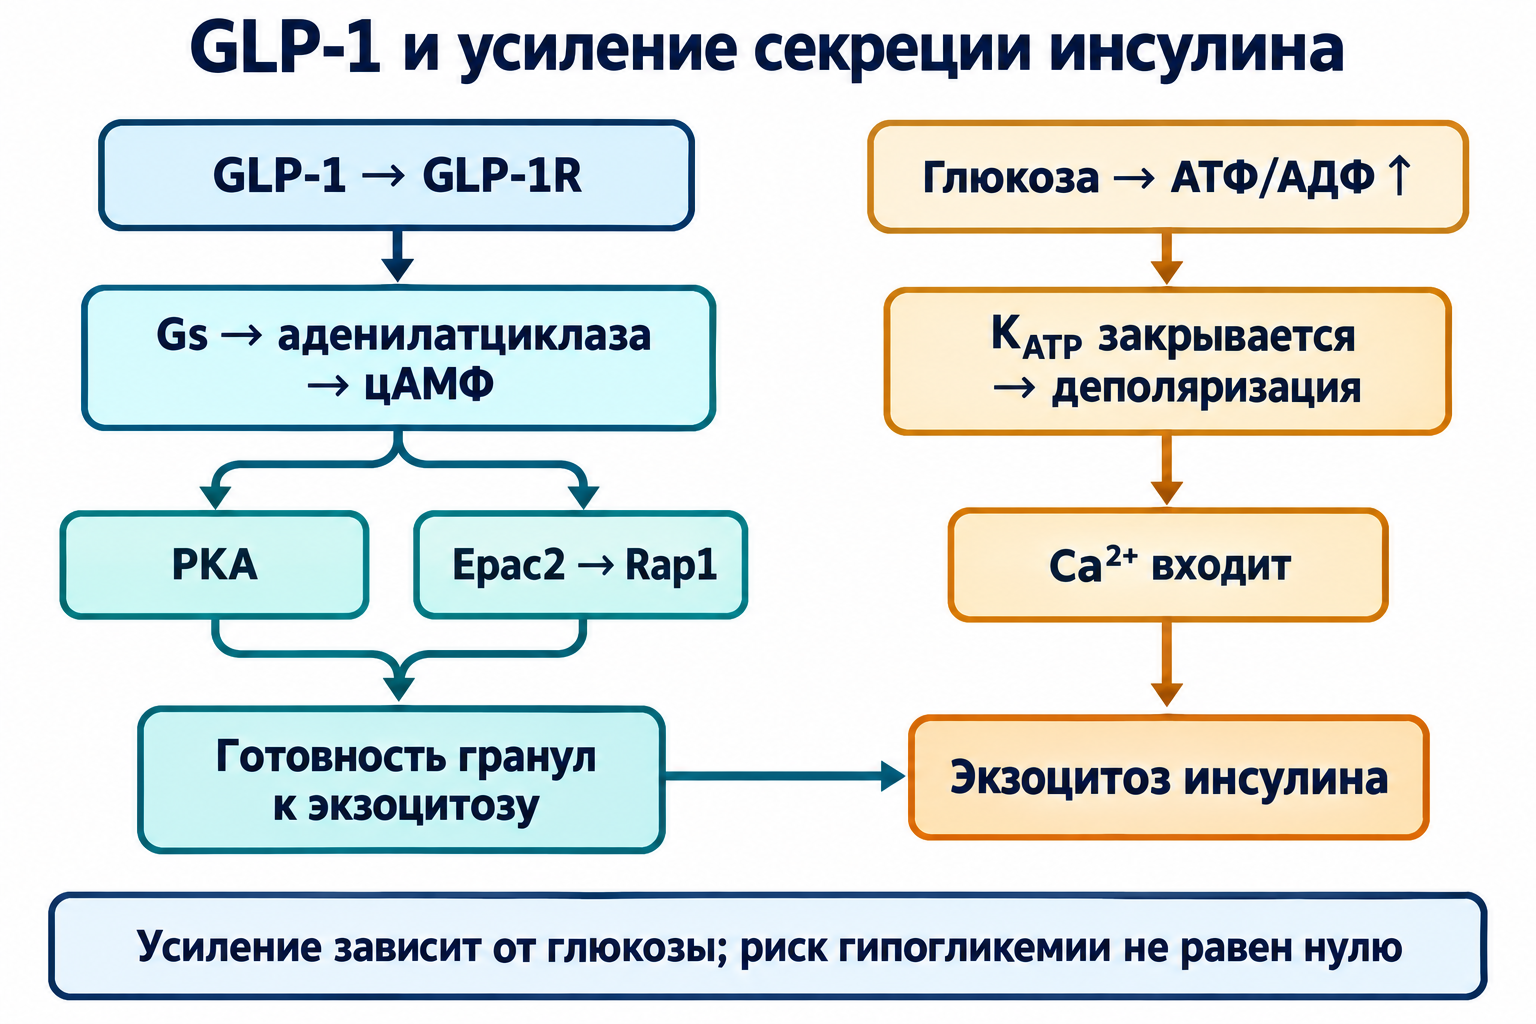
Глюкозозависимость означает низкий собственный риск гипогликемии, но не абсолютную безопасность во всех сочетаниях. Утверждения об отсутствии секреции при эугликемии и нулевом риске чрезмерны. Инсулин и сульфонилмочевина меняют клинический риск. Пороги 4,5–5,0 или 3,8–4,0 ммоль/л не описывают всех пациентов и все эксперименты.
При подходящей гликемии GLP-1 подавляет глюкагон. Соматостатин δ-клеток действует через SSTR2 α-клеток и является важным паракринным механизмом. Инсулин, локальные сигналы и возможные прямые эффекты рассматривают в зависимости от модели. Gi-зависимое торможение не доказывает мгновенной полной блокады всех кальциевых каналов. Сохранение контррегуляции при низкой глюкозе — физиологическая тенденция, а не универсальный численный переключатель.
PKA/CREB, Akt, белки семейства Bcl-2 и PDX1 связывают рецептор с синтезом инсулина, выживанием и дифференцированной функцией β-клеток. Активация CREB обычно включает фосфорилирование и контроль кофакторов; формулировка «дефосфорилированный активный CREB» противоречит этому пути. Пролиферация и предполагаемый неогенез у грызунов не доказывают регенерации β-клеточной массы взрослого человека пищей, добавками или лекарствами.
DPP-4/CD26, EC 3.4.14.5, — мембранная сериновая пептидаза типа II, имеющая и растворимую форму. Гликозилированные мономеры образуют димер; внеклеточная часть содержит восьмилопастной β-пропеллер и α/β-гидролазный домен. Структура Rasmussen 1N1M содержит аналог субстрата/ингибитор; связанный PubMed ID — 12483204, а не 12483274. Каталитическая триада человека: Ser630–Asp708–His740. Предпочтение субстратов с предпоследним N-концевым пролином или аланином выражено, но слово «исключительно» слишком категорично.
Mentlein (1993) и Deacon (1995) установили быстрый N-концевой распад. DPP-4 гидролизует связь после Ala8 и освобождает His7–Ala8:
Атака серина сначала создаёт тетраэдрический промежуточный продукт, затем ацил-фермент; гидролиз водой высвобождает продукт. Это разные стадии, а не единый «тетраэдрический ацил-фермент». Укороченный пептид значительно теряет обычную инкретиновую активность. Антагонизм и рецептор-независимые метаболические или сердечно-сосудистые эффекты исследованы при определённых концентрациях и в отдельных моделях. Универсальное тысячекратное изменение сродства и физиологически существенный субнаномолярный антагонизм из исходного материала не следуют.
Период полужизни интактного GLP-1 составляет примерно одну–две минуты. Деградация в кишечных капиллярах, печени и кровотоке ограничивает системную экспозицию. Часто приводимые 10–15% секретированного интактного пептида, достигающего системной крови, — зависимая от модели оценка, а не фиксированная доля каждого приёма пищи. Для последовательной экстракции нужно указать, относится ли процент к исходному или оставшемуся количеству: произведение остаточных долей не равно вычитанию обеих потерь из начального пула.
Идеализированный распад первого порядка после прекращения секреции:
C — концентрация интактного пептида, t — время, k — константа с размерностью обратного времени. При продолжающейся секреции и распределении эта формула не описывает любой постпрандиальный образец. Изолированная константа Михаэлиса in vitro не определяет клиренс in vivo. Необоснованно требование инфузий порядка сотен пмоль/кг/мин: человеческие эксперименты использовали существенно меньшие величины. Протокол инфузии здесь не назначается.
Неприлизин NEP/CD10, EC 3.4.24.11, расщепляет внутренние пептидные связи. Почки участвуют в удалении пептида и метаболитов, а хроническая болезнь почек меняет экспозицию. Точные места разреза, обязательный захват megalin–cubilin и полное почечное удаление каждого фрагмента требуют самостоятельных доказательств. Анализы «общего» и «активного» GLP-1 измеряют разные пулы. Условия отбора и предотвращение деградации ex vivo важны; одна концентрация не определяет число L-клеток, чувствительность рецептора или насыщение.
L-клетки открытого типа контактируют с просветом апикальным отростком и выделяют гормон базолатерально. Они обогащены дистально, но присутствуют и проксимально; некоторые совместно экспрессируют PYY и другие гормоны. Не все рецепторы находятся только на апикальных микроворсинках. Всасывание, базолатеральный доступ, вид, сегмент кишечника и метод подготовки изменяют наблюдаемое распределение сенсоров.
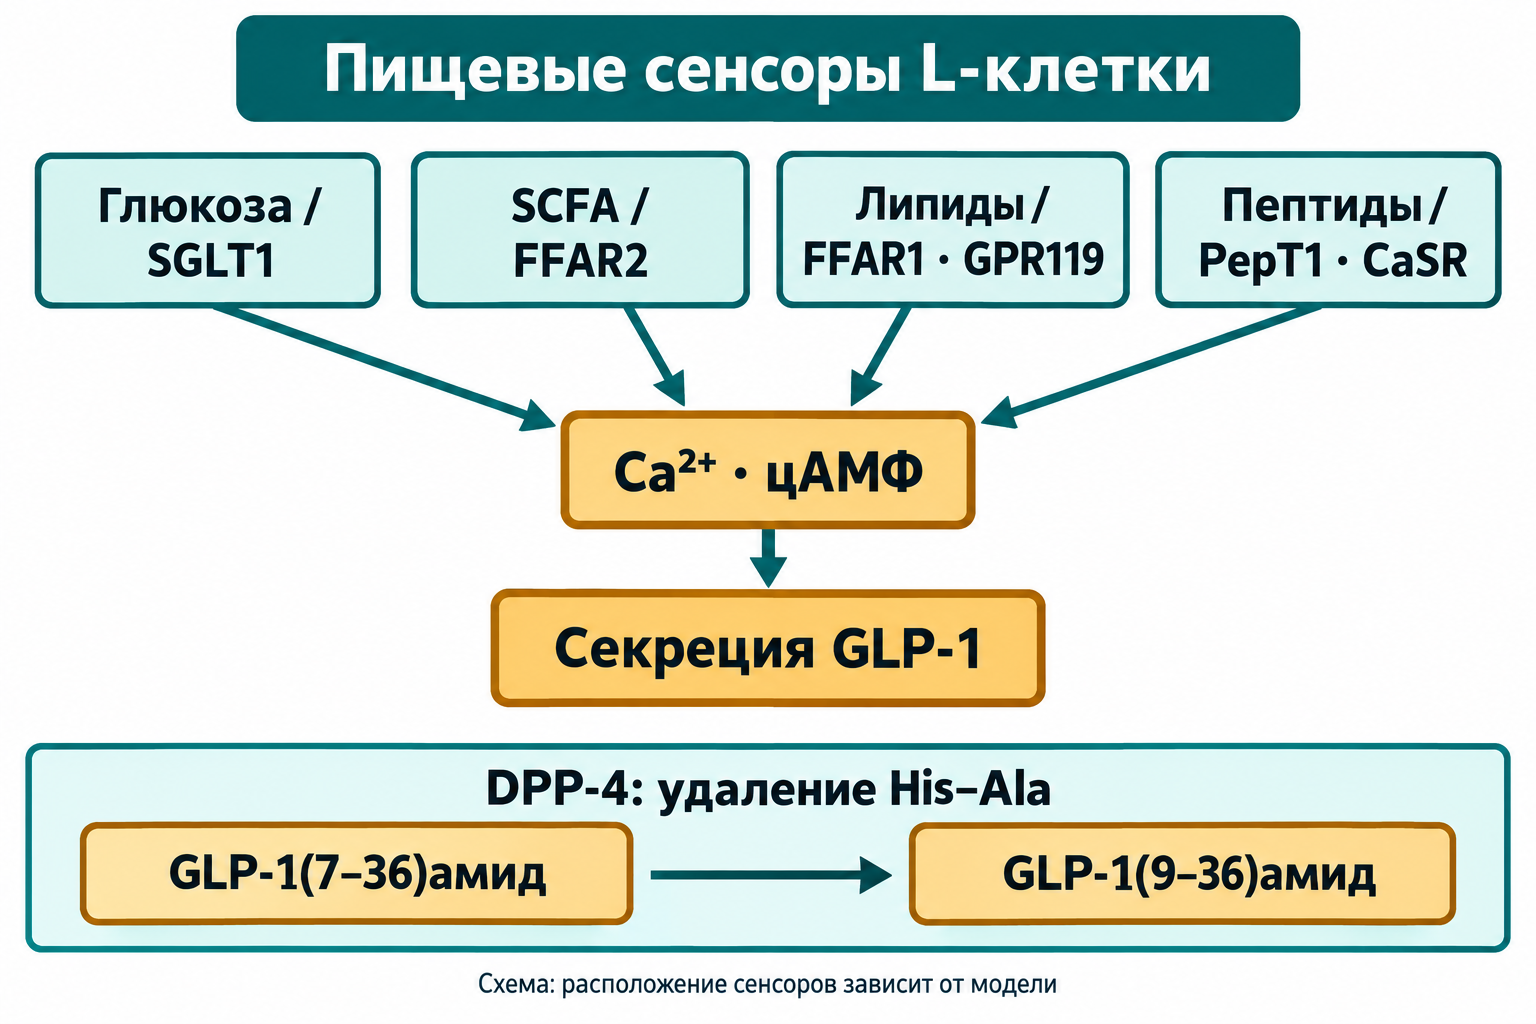
Ферментация плохо перевариваемых углеводов образует ацетат, пропионат и бутират. Просветные концентрации, соотношения и системная экспозиция различаются. Tolhurst (2012) показал FFAR2-зависимую секрецию в экспериментальных системах. FFAR2/GPR43 сопрягается с Gq/11 и Gi/o; Gq–PLC–IP3 может высвобождать внутриклеточный кальций. FFAR3/GPR41 преимущественно сопряжён с Gi/o: его нельзя считать универсальным стимулирующим cAMP-путём. Lin (2012) показал эффекты, независимые от FFAR3, что поддерживает множественность механизмов.
Бутират может ингибировать гистондеацетилазы и влиять на метаболизм и дифференцировку эпителия. NEUROG3 и NEUROD1 входят в программы развития энтероэндокринных клеток. Это делает изменение секреторной ёмкости экспериментально правдоподобным, но не доказывает, что любая доза клетчатки повышает именно H3K9ac/H3K27ac у человеческого промотора GCG или вызывает полезную L-клеточную гиперплазию. Острое высвобождение гормона и долгосрочная дифференцировка — разные исходы.
FFAR1/GPR40 и FFAR4/GPR120 распознают длинноцепочечные жирные кислоты в соответствующих моделях. Hirasawa (2005) помог установить FFAR4-связанную секрецию. Gq/кальций и β-аррестиновые противовоспалительные пути важны экспериментально, но наблюдения FFAR4–TAB1–TAK1 в других клетках нельзя автоматически приписывать каждой L-клетке человека.
GPR119 распознаёт липидные лиганды, включая 2-моноацилглицеролы и олеоилэтаноламид OEA; Lauffer (2009) изучал OEA-зависимую секрецию в L-клеточных моделях. Gs–cAMP отличается от Gq–IP3. Усиление экзоцитоза через cAMP не означает независимость секреции от кальция. Пищевая олеиновая кислота, образование лиганда и оливковое масло не являются взаимозаменяемыми определениями фармакологического агониста. OEA синтезируется через липидные промежуточные продукты и имеет связанную с PPARα биологию насыщения; это не одностадийное превращение олеиновой кислоты исключительно ради GPR119.
SGLT1/SLC5A1 осуществляет электрогенный натрий-зависимый транспорт глюкозы и галактозы. Обычная стехиометрия — два иона натрия на молекулу глюкозы:
Градиент натрия, косвенно поддерживаемый Na/K-ATPase, обеспечивает вход и деполяризацию. Вход кальция запускает секрецию. Gorboulev (2012) установил важность SGLT1 для всасывания и инкретинового ответа. GLUT2 и сладкие рецепторы TAS1R2/TAS1R3 участвуют в зависимости от модели. Блокирование проксимального транспорта может ослабить ранний ответ, но изменить дистальную доставку и позднюю секрецию: исчезновение всего GLP-1 не обязательно.
PepT1/SLC15A1 переносит ди- и трипептиды с протонами и участвует в электрогенном распознавании. CaSR, GPCR класса C, воспринимает внеклеточный кальций и аминокислотную модуляцию, особенно ароматические аминокислоты в соответствующих условиях. Глутамин, аргинин и гидролизаты белка действуют через транспорт, метаболизм и рецепторы; сведение всех к одному карману CaSR чрезмерно.
Работы по вкусовой сигнализации, включая Kokrashvili (2009), рассматривают gustducin, PLCβ2, IP3 и TRPM5. TRPM5 проводит одновалентные катионы и способствует деполяризации после кальциевого сигнала, но сам не является кальциевым каналом. Эффекты горьких TAS2R и сладких TAS1R зависят от соединения и модели. Горький продукт или полифенол поэтому не становится доказанным эффективным GLP-1-лечением человека.
Сенсорные нейроны блуждающего нерва, узловой ганглий, ядро одиночного пути NTS и другие стволовые структуры интегрируют механические, кишечные и метаболические сигналы. GLP-1R-положительные вагальные популяции имеют разные функции, включая механорецепцию; это не одинаковые окончания непосредственно после L-клетки.
Проглюкагоновые нейроны ствола мозга сами синтезируют GLP-1 и проецируются в гипоталамус и другие области. Центральную систему описывают Trapp и Cork (2015). Brierley (2021) экспериментально показал, что центральная и периферическая системы могут подавлять питание через независимые цепи. Это ограничивает обязательную линейную схему L-клетка→вагус→PPG→гипоталамус.
Area postrema и median eminence — специальные области доступа. Значимы доступ конкретного лекарства к мозгу, длительность экспозиции, распределение рецепторов и барьеры. Фенестрированные капилляры не означают свободного проникновения нативного пептида во весь мозг. OVLT нельзя объявлять универсальными доказанными воротами анорексигенного действия без отдельной проверки. Sisley и Secher (2014) выявили нейрональные и аркуатные механизмы лираглутида в экспериментах; это не одинаковый путь каждого физиологического импульса.
POMC/CART, α-MSH–MC4R и NPY/AgRP интегрируют энергетические сигналы, включая прямые и косвенные связи, тормозные интернейроны и проекции за пределы аркуатного ядра. Общие компоненты с лептиновой сигнализацией и резистентностью не делают гормоны эквивалентными. Alhadeff (2012) показал GLP-1-проекции к VTA и nucleus accumbens, участвующие в потреблении пищи. Модуляция вознаграждения не является полным устранением дофамина, гедонического аппетита или «пищевого шума». Последнее выражение не определяет конкретный синапс и универсальный эффект лечения.
GLP-1 способен замедлять опорожнение желудка через вагальные и энтеральные связи, аккомодацию желудка и координацию привратника. Растяжение добавляет механосенсорную информацию. IGLE — intraganglionic laminar endings, IMA — intramuscular arrays; «Intraneural Galvanic Mechanoreceptors» не является корректной анатомической категорией. Эффект зависит от исходной скорости, агониста и экспозиции, может ослабевать при длительной стимуляции. Замедление опорожнения, снижение потребления и тошнота — связанные, но разные наблюдения.
Экспериментальные PKA/AMPK/eNOS/NO-пути формируют сосудистые гипотезы; модели mPTP рассматривают ишемическое повреждение. Нельзя предполагать GLP-1R в каждой эндотелиальной, гладкомышечной или сердечной клетке по результатам невалидированных антител. Сердечно-сосудистая польза отдельных лекарств определяется исследованиями исходов, а не одним фосфорилированием и не переносится автоматически на нутриенты.
Crajoinas исследовал PKA-связанную регуляцию NHE3/SLC9A3 и натриевый транспорт почек. Канальцевые результаты не устанавливают точную локализацию человеческого GLP-1R; возможны сосудистые и косвенные механизмы. Натрийурез, изменение давления и долгосрочные почечные исходы — разные уровни доказательств. Видоспецифичные фосфосайты и апикальная локализация требуют отдельного подтверждения.
NF-κB и NLRP3-связанные результаты поддерживают изучение воспаления, но не доказывают функционального GLP-1R в каждом макрофаге. NLRP3–caspase-1 непосредственно относится к обработке IL-1β и IL-18: IL-6 и TNF не являются всеми расщепляемыми продуктами этого комплекса. Изменения веса, гликемии и тканевого стресса могут действовать косвенно.
Печёночные эффекты включают инсулин/глюкагон, снижение поступления жирных кислот из жировой ткани и изменение питания. Экспрессия GLP-1R в гепатоцитах остаётся методологическим вопросом. Гипотезы SREBP-1c и AMPK не доказывают излечения MASH нативным гормоном или добавками. Newsome (2021), фаза 2, выявил более частое разрешение стеатогепатита при семаглутиде, но не значимое межгрупповое улучшение стадии фиброза. Гистология, печёночный жир, трансаминазы и клинические исходы различаются.
Лираглутид и семаглутид — агонисты GLP-1R. Семаглутид сочетает устойчивую к DPP-4 аминокислотную замену и C18-жирнокислотный диацильный компонент для связывания альбумина; лираглутид имеет C16-ацильную цепь. Период около недели относится к семаглутиду, а не всем агонистам. Тирзепатид действует на GIP и GLP-1R, ретатрутид — на GIP, GLP-1R и глюкагоновый рецептор: это не «три мозговых рецептора сытости».
| Опубликованное исследование | Участники и экспозиция | Результат веса | Ограничение |
|---|---|---|---|
| STEP 1, Wilding 2021 | 1961 взрослый; семаглутид 2,4 мг еженедельно; 68 недель | Среднее −14,9%, плацебо −2,4% | Средний результат вместе с изменением образа жизни, не гарантия каждому |
| SURMOUNT-1, Jastreboff 2022 | 2539 взрослых без диабета; 72 недели | При 15 мг тирзепатида еженедельно −20,9%, плацебо −3,1% | 22,5% относится к другой оценочной стратегии; SURPASS — отдельная программа диабета |
| Ретатрутид, фаза 2, Jastreboff 2023 | 338 взрослых; 48 недель | При 12 мг еженедельно −24,2%, плацебо −2,1% | Исторический результат фазы 2, не доказательство пищевой эквивалентности или текущего регуляторного статуса |
Это опубликованные режимы для понимания данных, а не индивидуальные назначения. Сравнение процентов между исследованиями не является рандомизированным сравнением препаратов. Актуальные показания и назначения требуют действующей информации о конкретном продукте.
Ингибиторы DPP-4, включая ситаглиптин и вилдаглиптин, сохраняют собственные активные инкретины, в том числе GIP. Ингибирование фермента не обязательно означает ковалентную блокаду всех трёх каталитических остатков. Обычно они нейтральны по весу и имеют низкий собственный риск гипогликемии, меняющийся при сочетаниях. Экспозиция и доказательства исходов отличаются от длительного агонизма; сердечно-сосудистые данные и риск сердечной недостаточности также зависят от препарата.
Инулин, резистентный крахмал, частично гидролизованная гуаровая камедь и некоторые β-глюканы различаются ферментируемостью, вязкостью и переносимостью; важна микробиота. Работа Cani (2009) о GLP-2 и кишечной проницаемости у мышей поддерживает связь микробиоты с метаболическим воспалением, а не гарантированный рост человеческих L-клеток. Клетчатка может быть полезна для нескольких пищевых целей, но универсальные 15–25 г добавки для «максимизации GLP-1» не валидированы. Перекрёстное питание бактерий не позволяет приписать одинаковое образование бутирата Bifidobacterium, Faecalibacterium и Akkermansia.
Подвздошный тормоз — обратная связь нутриентов, гормонов и моторики, описанная Maljaars (2008). Ингибиторы амилазы Phaseolus vulgaris и 1-дезоксиноджиримицин DNJ из Morus alba могут менять переваривание углеводов в соответствующих продуктах. SGLT1 переносит моносахариды, а не непереваренные олигосахариды. Замедление переваривания меняет дистальную доставку глюкозы или ферментацию, но не доказывает мощную SGLT1–GLP-1-волну от любого экстракта. Важны стандартизация, активность фермента и человеческие исходы.
Эксперименты Lu (2009) с берберином у крыс со стрептозотоциновым диабетом — механистическая отправная точка, а не доказательство универсальной человеческой цепи AMPK–GCG–микробиота. Экспозиция и взаимодействия отдельно рассмотрены в обзоре берберина и дигидроберберина. Режим «500 мг дважды в день в инкретиновом стеке» из доклинического опыта не выводится.
Оливковое масло содержит олеиновую кислоту и другие вещества и может быть частью рациона. Липидная секреция и синтез OEA не превращают 15–20 мл в терапевтическую дозу агониста. Для веса нужно учитывать добавленную энергию.
Белковые преднагрузки, включая сывороточный белок, в небольших контролируемых исследованиях человека меняли инкретины, инсулин, опорожнение желудка и постпрандиальную гликемию. Количество, время, диабет, состав последующей пищи и дополнительная энергия различались. 15–20 г за 15–30 минут — семейство возможных исследованных стратегий, а не универсальное назначение или полное устранение скачка глюкозы. Аминокислоты напрямую влияют на инсулин и глюкагон, поэтому весь эффект нельзя автоматически приписать GLP-1.
Jakubowicz (2014) исследовал 15 участников в остром перекрёстном испытании с 50 г сывороточного белка. Оно не валидирует любую меньшую дозу.
| Вмешательство | Возможный путь | Что ещё требуется установить |
|---|---|---|
| Ферментируемая клетчатка | SCFA, эпителиальный метаболизм, FFAR | Исходы конкретного продукта у человека и переносимость |
| Фасоль/шелковица | Переваривание и дистальная доставка | Стандартизированная активность и клинические результаты |
| Берберин | Доклиническая секреция, микробиота и метаболизм | Человеческий механизм, взаимодействия и польза |
| Оливковое масло | Липидные сенсоры и лиганды | Замена продуктов против добавленной энергии; нет универсальной GLP-1-дозы |
| Белковая преднагрузка | Аминокислоты/пептиды, инсулин, моторика | Подходящее количество, время и длительная польза |
BMAL1, CLOCK и PER связывают энтероэндокринные функции с циркадной биологией в моделях. У человека утренне-вечерние различия также зависят от сна, порядка и состава пищи, толерантности к глюкозе. Универсальный утренний максимум GCG/SGLT1 и единое время назначения не следуют.
Grant (2006) связал варианты TCF7L2, включая rs7903146, с риском диабета 2-го типа. Это не доказывает большей дозы клетчатки для TT или детерминированного подавления кишечного проглюкагона. Варианты GLP1R, например rs10305492, и DPP4 могут влиять на отдельные признаки; вариант рецептора не равен изменённой деградации DPP-4. Ассоциация, функция и предсказание ответа требуют разных доказательств.
Наблюдение должно отвечать конкретному вопросу: симптомы, глюкоза/HbA1c, вес, полноценность питания и соответствующие почечные/печёночные риски. Постпрандиальная вариабельность и CGM помогают понять пределы сенсорных данных. CGM не измеряет GLP-1 и не доказывает его посредничество; он не обязателен для каждого, кто добавляет клетчатку или белок. Не установлен обязательный скрининг панкреатических ферментов перед неопределённым «стеком». Симптомы панкреатита, выраженная непереносимость и сильная задержка опорожнения требуют клинической оценки. Противопоказания относятся к конкретному вмешательству; язвенный колит не является общим запретом на все перечисленные продукты и волокна.
Это повествовательный научный обзор с адресной проверкой спорных структурных идентификаторов, механизмов и результатов испытаний по доступным первичным записям и публикациям 8 октября 2026 года. Он не является систематическим обзором, независимой оценкой GRADE, клинической валидацией или внешним рецензированием. Пищевая секреция, экспериментальные пути и фармакологические исходы сохранены на соответствующих уровнях доказательств. Целью служит подходящий пищевой или клинический результат, а не максимальное значение гормона от невалидированной комбинации.
Нет. Экспозиция и клинические доказательства различаются.
Он удаляет N-концевой дипептид и существенно снижает обычную инкретиновую активность.
Нет. Центральное образование и периферические сигналы могут действовать независимо.
Нет. Собственный риск низок, но сочетания лекарств и клиническая ситуация важны.
Приведённые ассоциации не валидируют дозирование по генотипу.