GLP-1: қоректік заттарды сезу, DPP-4 және ішек–ми жүйесі
Проглюкагон өңделуі, GLP-1R, глюкозаға тәуелді инсулин, DPP-4 және L-жасуша сенсорлары. Ми желілері, сынақтар және тағамдық стратегиялардың шегі.
Проглюкагон өңделуі, GLP-1R, глюкозаға тәуелді инсулин, DPP-4 және L-жасуша сенсорлары. Ми желілері, сынақтар және тағамдық стратегиялардың шегі.
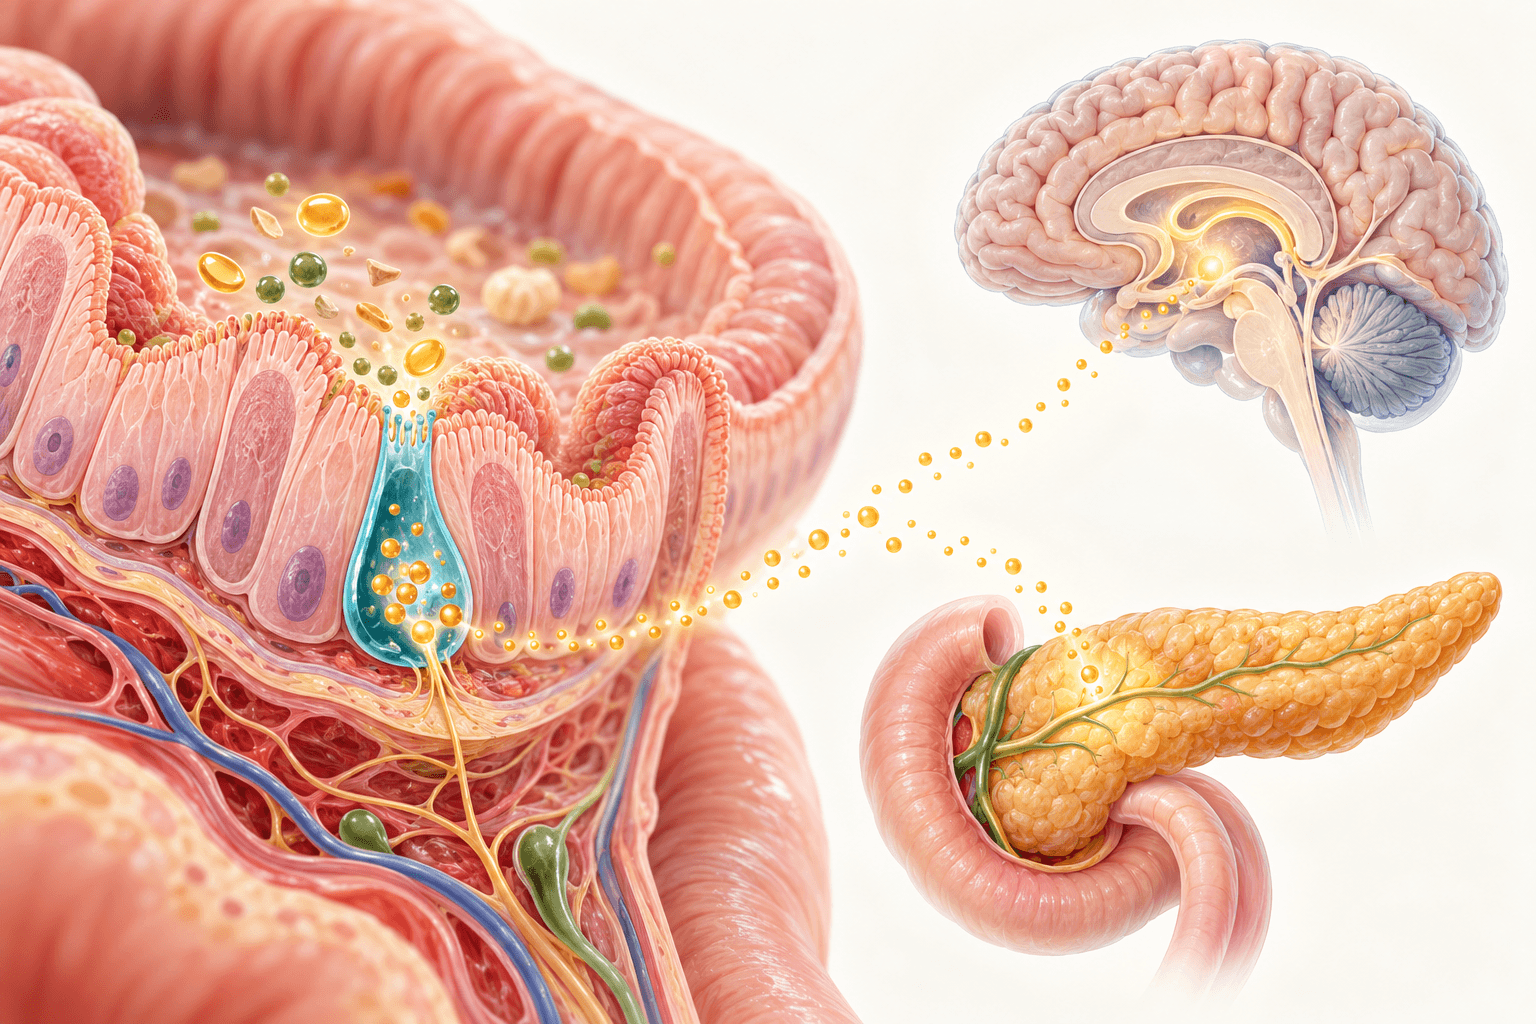
Глюкагон тәрізді пептид-1 ішекке қоректік заттардың келуін инсулин секрециясымен, асқазан моторикасымен және тамақ қабылдаумен байланыстырады. Ол глюкоза ауыз арқылы түскенде, қандағы глюкоза бірдей болғанның өзінде, көктамырлық енгізуге қарағанда инсулиннің неге көбірек бөлінетінін түсіндіруге көмектеседі. Осыдан энтероэндокриндік L-жасушаларды ынталандыратын тағамдарға қызығушылық туындайды. Бірақ тамақтан кейін ағзаның өз GLP-1 деңгейінің қысқа көтерілуі дәрілік рецептор агонистерінің ұзақ әсерін қайталамайды және салмақтың сондай төмендеуін немесе аурулардан қорғануды дәлелдемейді.
Адамның 2q24.2 аймағындағы GCG гені препроглюкагонды кодтайды. Оның құрамында сигналдық пептид бар; жиі айтылатын 160 аминқышқылды проглюкагон — сол сигнал алынғаннан кейінгі тізбек, толық трансляция өнімі емес. Экзондардың модульдік ұйымдасуы туыстас пептидтердің тізбектерін біріктіреді. Нақты шекаралар, транскрипт ұзындығы мен кесу орындары үшін транскрипт және нөмірлеу жүйесі көрсетілуі керек; бәріне ортақ алты блоктық карта жеткіліксіз.
Ұйқы безінің қалыпты α-жасушалық жолында PCSK2 кодтайтын PC2 прогормонконвертазасы басым. Глюкагон және глюкагонмен байланысты панкреатикалық полипептид бөлінеді, ал GLP тізбектері үлкен C-ұштық MPGF фрагментінде қалады. Ішектің L-жасушаларында және ми бағанының проглюкагондық нейрондарында PCSK1 өнімі PC1/3 GLP-1, GLP-2 және басқа туындылардың түзілуін қолдайды. Глицентин мен оксинтомодулин ұзын тізбек ішінде глюкагон тізбегін сақтайды. Оксинтомодулин биологиялық белсенді, сондықтан оны жай «бұғатталған глюкагон» деу қате. Зақымдану немесе метаболизмдік стресс α-жасушалық өңдеуді өзгерте алады: тіндік айырмашылық басым үлгі болғанымен, өзгермейтін тыйым емес.
Белсенді табиғи GLP-1(7–36)амид пен GLP-1(7–37) тиісінше 30 және 31 аминқышқылдан тұрады. Нөмірлеу толық ізашарға емес, GLP-1 бөлігіне қатысты. N-ұштық гистидин рецептор белсенділігі үшін маңызды. GLP-1(1–37) кәдімгі инкретиндік әсері әлдеқайда төмен; жетілуді белгісіз бір міндетті ферменттік қадамға теңеу өңдеудің ерекшелігін жасырады.
Пептидилглицин-α-амидтеуші монооксигеназа PAM глицинмен ұзартылған пептидті амидтелген түрге айналдырады. Гидроксилдеуші және лиазалық белсенділіктерге оттегі, мыс және аскорбаттың тотықсыздандыру эквиваленттері қатысады; глиоксилат бөлінеді. Бұл толық теңестірілген химиялық теңдеу емес, жетілу сызбасы:
Адамдағы көптеген өлшеулерде амидтелген түр белсенді қордың шамамен бестен төртін құрайды, бірақ үлес талдау мен сынама алуға тәуелді. Екі түр де GLP-1R белсендіреді; бірінің басымдығы оның клиникалық артықшылығын көрсетпейді. Өңдеу және инкретин физиологиясы Drucker (2006), Holst (2007), Baggio және Drucker (2007) еңбектерінде қарастырылған.
GLP-1R — B1 класының G-ақуызбен байланысқан рецепторы. Оның жасушадан тыс N-ұштық домені, жеті трансмембраналық спиралі, ілмектері және цитоплазмалық C-ұштық бөлігі бар. Екі домендік үлгіде пептидтің C-ұшы сыртқы доменмен, N-ұшы трансмембраналық өзекпен әрекеттеседі. Белсенді конформацияда TM6-ның ішкі бөлігі сыртқа жылжып, Gs үшін орын ашады. Бұл пептидтегі каталитикалық орталық емес, құрылымдық тану.
Құрылымдық идентификаторлар бірдей мағына бермейді. Zhang және әріптестердің 2017 жылғы PDB 5VAI кешенінде қоян рецепторы және бірнеше түрдің компоненттері бар. PDB 6B3J — сигналдық ығысуы бар пептидтік агонистпен байланысқан адам GLP-1R–Gs кешені; PDB 6ORV құрамында пептидтік емес TT-OAD2 бар. Бұлар табиғи адам GLP-1-інің өзара алмастырылатын үш құрылымы емес. Жеке қалдық контактілері, орын ауыстыру шамасы және «иондық құлыптар» нақты конструкт пен салыстыруға қатысты. Liang 2017 басқа B класының рецепторын зерттеген, оны GLP-1R құрылымы орнына қолдануға болмайды.
Рецептор белсенуі Gαs-та GDP–GTP алмасуын және аденилатциклазаны қолдайды. ATP-ден циклдік AMP түзіледі:
цАМФ PKA және RAPGEF4 кодтайтын Epac2 алмасу факторын белсендіреді. PKA иондық арналарға, экзоцитоз ақуыздарына және транскрипциялық жауаптарға, соның ішінде CREB фосфорлануына ықпал етеді. Epac2 Rap1-ді белсендіреді, RIM2, Piccolo, Rab3, Munc13 арқылы түйіршіктерді тарту мен дайындауға қатысады. PLCε және жасушаішілік кальцийдің босатылуы кейбір тәжірибелік жағдайларда қосылады. Секрецияға әзірлік артады, бірақ кальцийдің қажеттілігі жоғалмайды.
GRK және β-аррестиндер десенситизацияны, ішке енгізуді және рецептор тасымалын реттейді. Аррестиндер ERK тәрізді қосымша сигналдарды ұйымдастыра алады. Алайда рецептордың ішке енуі барлық Gs-сигналын міндетті түрде тоқтатпайды: эндосомалық сигнал және лиганд қасиеттері маңызды. «Аррестин байланысады — бүкіл цАМФ тоқтайды — тәуелсіз Akt басталады» деген әмбебап сызықтық ереже дәлелденбеген.
McIntyre және Elrick топтары ауыз арқылы және көктамыр арқылы енгізудегі инсулин айырмасын 1964 жылы тәуелсіз көрсетті. Қазіргі салыстыруда көктамырлық глюкоза жылдамдығы ауыздан кейінгі профильді қайталау үшін реттеледі; тұрақты бір жылдамдық изогликемияны қамтамасыз етпейді. Салыстырмалы инсулин немесе C-пептид қисық астындағы аудандары үшін:
AUC — белгіленген уақыттағы аудан; екі сынақта көрсеткіш пен бастапқы деңгейді есептеу тәсілі бірдей болуы керек. Бөлімде ауыз арқылы алынған AUC тұр: екі еселік жауап 200% емес, 50% инкретиндік әсер береді. Дені сау адамдардағы қолайлы зерттеулерде шамамен 50–70% кездеседі, бірақ жүктеме мен хаттамаға тәуелді. GLP-1 және глюкозаға тәуелді инсулинотроптық полипептид GIP бірге қатысады. GIP K-жасушалары проксималды бөлікте басым; L-жасушалар барлық ішекте болып, дисталды жақта көбейеді. 2-типті диабетте β-жасуша жауабының, әсіресе GIP-ке сезімталдықтың төмендеуі және басқа өзгерістер әсерді азайтады. Бұл барлық жағдайда GLP-1 тапшылығы немесе 20%-дан төмен бір шек емес.
Глюкозаның түсуі мен глюкокиназалық метаболизмі ATP/ADP қатынасын арттырады. Адам β-жасушаларында GLUT1/GLUT3 маңызды, бұл кеміргіштердің жиі қолданылатын GLUT2 үлгісінен өзгеше. Глюкокиназа EC 2.7.1.2, кәдімгі гексокиназаның EC 2.7.1.1 нөмірі оған сәйкес емес. Kir6.2/SUR1 ATP-сезімтал калий арналары жабылады, калий өткізгіштігі төмендейді, мембрана деполяризацияланады, потенциалға тәуелді кальций арналары ашылады. Арна үлесі мен мембрана потенциалы түрге және жасушалық препаратқа тәуелді.
GLP-1R–цАМФ осы глюкоза қолдайтын процесті күшейтеді. PKA мен Epac2 кальций сезімталдығын және түйіршіктердің қолжетімділігін өзгертеді. Тез босатылатын және резервтік қорлар ерте және ұзақ секреция фазаларын түсіндіруге көмектеседі. SNARE syntaxin, SNAP-25, VAMP2, synaptotagmin тәрізді кальций сенсорлары және дайындау ақуыздары қатысады; әрбір ұсынылған контакт барлық жасушада міндетті емес.
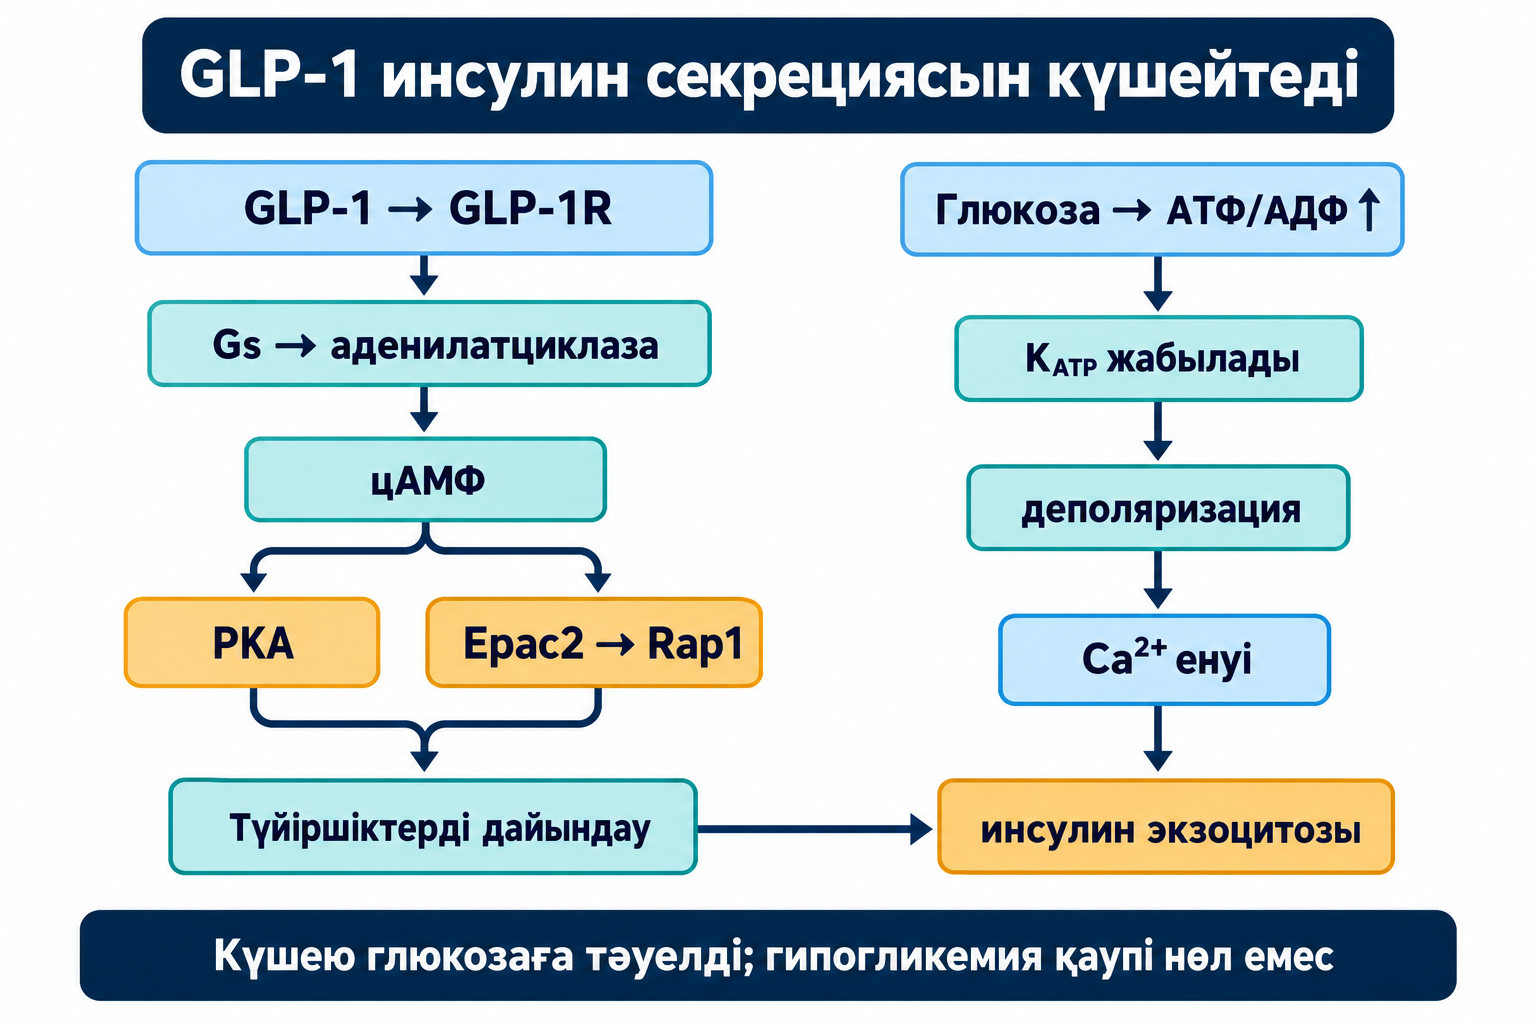
Глюкозаға тәуелділік гипогликемияның өздік қаупін төмендетеді, бірақ кез келген жағдайда нөлге түсірмейді. Эугликемияда мүлде секреция болмайды деген сөз артық. Қатар қолданылған инсулин немесе сульфонилмочевина қауіпті өзгертеді. 4,5–5,0 не 3,8–4,0 ммоль/л тұрақты шектері барлық пациент пен экспериментті қамтымайды.
Тиісті гликемияда GLP-1 глюкагонды да тежейді. δ-жасушалық соматостатин α-жасушаның SSTR2 рецепторына әсер етіп, маңызды паракриндік жол құрайды. Инсулин, жергілікті сигнал және ықтимал тікелей әсер үлгіге қарай қарастырылады. Gi арқылы тежеу барлық кальций арнасының лезде толық бұғатталуын дәлелдемейді. Төмен глюкозада қарсы реттеудің сақталуы — физиологиялық үрдіс, әмбебап сандық ауыстырғыш емес.
PKA/CREB, Akt, Bcl-2 тобы мен PDX1 тәжірибелік жүйелерде инсулин түзілуін, жасуша тіршілігін және β-жасушаның жетілген қызметін байланыстырады. CREB белсенуі әдетте фосфорлану мен кофакторлық бақылауды қамтиды; «дефосфорланған белсенді CREB» осы жолды кері көрсетеді. Кеміргіштердегі пролиферация немесе ықтимал неогенез ересек адам β-жасушаларын тағам, қоспа немесе дәрі қайта қалпына келтіреді деген дәлел емес.
DPP-4/CD26, EC 3.4.14.5, — II типті мембраналық серин пептидазасы, оның ерігіш түрі де бар. Гликозилденген мономерлер димер түзеді; сыртқы бөлігінде сегіз қалақшалы β-пропеллер және α/β-гидролаза домені бар. Rasmussen 1N1M құрылымында ингибитор/субстрат аналогы бар; дұрыс PubMed нөмірі 12483204, 12483274 емес. Адамның каталитикалық үштігі Ser630–Asp708–His740. N-ұшынан екінші пролин не аланинге айқын басымдық бар, бірақ ол толық ерекше субстраттық тыйым емес.
Mentlein (1993) және Deacon (1995) N-ұштық тез ыдырауды көрсетті. DPP-4 Ala8-ден кейінгі байланысты гидролиздеп, His7–Ala8 жұбын бөледі:
Сериннің шабуылы алдымен тетраэдрлік аралық өнім, кейін ацил-фермент түзеді; су гидролизі өнімді босатады. Бұлар бір «тетраэдрлік ацил-фермент» емес, бөлек кезеңдер. Қысқарған пептид кәдімгі инкретиндік белсенділігін едәуір жоғалтады. Антагонизм және рецепторға тәуелсіз жүрек-қантамырлық/метаболизмдік әсерлер белгілі концентрация мен үлгілерде зерттелген. Әмбебап мың еселік туыстық өзгерісі мен физиологиялық маңызды субнаномолярлық антагонизм бастапқы мәтіннен дәлелденбейді.
Интактты табиғи GLP-1-дің айналымдағы жартылай өмірі шамамен бір–екі минут. Ішек капиллярлары, бауыр және қан айналымы жүйелік экспозицияны шектейді. Секреттелген интактты пептидтің тек 10–15%-ы жүйелік қанға жетеді деген жиі баға үлгіге тәуелді, әр тамақтануға тұрақты үлес емес. Кезекті экстракция пайыздары бастапқы қорға ма, қалған мөлшерге ме қатысты екені айтылуы керек; қалдық үлестердің көбейтіндісі бастапқы қордан екі шығынды алып тастаумен бірдей емес.
Секреция тоқтағаннан кейінгі бірінші реттік идеалданған ыдырау:
C — интактты концентрация, t — уақыт, k — кері уақыт бірлігі бар тұрақты. Жалғасқан секреция мен таралу кез келген тамақтан кейінгі сынаманы осы теңдеумен сипаттауға мүмкіндік бермейді. In vitro Михаэлис тұрақтысы ағзадағы клиренсті жеке анықтамайды. Жүздеген пмоль/кг/мин табиғи инфузия міндетті деген пікір негізсіз; адам эксперименттері әлдеқайда төмен шамаларды қолданды. Мұнда инфузия хаттамасы ұсынылмайды.
Неприлизин NEP/CD10, EC 3.4.24.11, ішкі пептидтік байланыстарды кеседі. Бүйрек пептид пен метаболиттердің шығарылуына қатысады; созылмалы бүйрек ауруы экспозицияны өзгертеді. Нақты кесу орындары, megalin–cubilin арқылы міндетті жұту және әр фрагменттің толық бүйректік шығарылуы бөлек дәлелдерді қажет етеді. «Жалпы» және «белсенді» GLP-1 талдаулары әртүрлі қорды өлшейді. Сынама алу және ex vivo ыдырауды тоқтату маңызды; бір концентрация L-жасуша саны, рецептор сезімталдығы немесе тоюды анықтамайды.
Ашық типті L-жасуша апикалдық өсіндісімен ішек қуысына жанасып, гормонды базолатералды бөледі. Дисталды бөлікте көбірек, бірақ проксималды жақта да бар; кейбірі PYY және басқа гормондарды бірге экспрессиялайды. Барлық рецептор тек апикалдық микробүрлерде емес. Сіңу, базолатералды қолжетімділік, түр, сегмент және препарат сенсорлардың байқалатын таралуын өзгертеді.
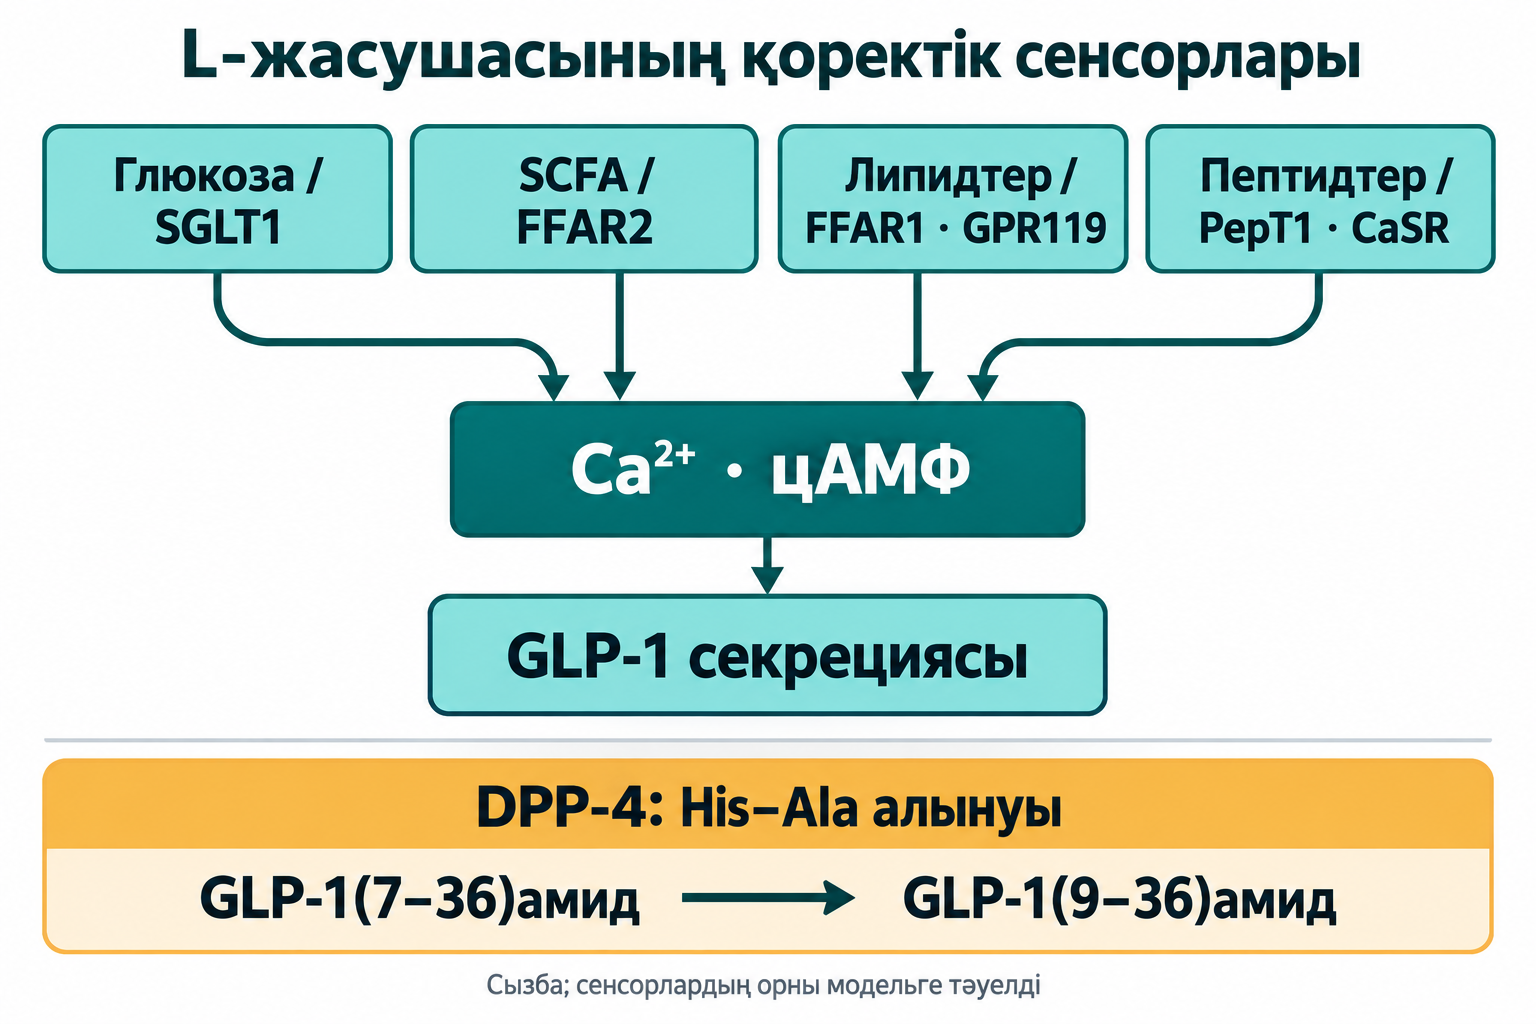
Нашар қорытылатын көмірсулардың ферментациясы ацетат, пропионат және бутират береді. Қуыс концентрациялары, қатынастары және айналымдағы экспозиция әртүрлі. Tolhurst (2012) тәжірибелік жүйелерде FFAR2-тәуелді секреция көрсетті. FFAR2/GPR43 Gq/11 және Gi/o-мен байланысады; Gq–PLC–IP3 жасушаішілік кальцийді босатады. FFAR3/GPR41 көбіне Gi/o арқылы әрекет етеді, оны әмбебап цАМФ-ті ынталандыратын жол деуге болмайды. Lin (2012) FFAR3-ке тәуелсіз әсерлер көрсетті, яғни бірнеше механизм бар.
Бутират гистондеацетилазаларды тежеп, эпителий метаболизмі мен жіктелуіне ықпал ете алады. NEUROG3 және NEUROD1 энтероэндокриндік даму бағдарламаларына кіреді. Бұл тәжірибеде секреторлық мүмкіндіктің өзгеруін ықтимал етеді, бірақ кез келген талшық дозасы адам GCG промоторында дәл H3K9ac/H3K27ac арттырады немесе пайдалы L-жасушалық гиперплазия тудырады деген дәлел емес. Жедел гормон босатылуы мен ұзақ жіктелу — бөлек нәтижелер.
FFAR1/GPR40 пен FFAR4/GPR120 тиісті препараттарда ұзын тізбекті май қышқылдарын сезеді. Hirasawa (2005) FFAR4-байланысты секрецияны анықтауға үлес қосты. Gq/кальций және β-аррестиндік қабынуға қарсы жолдар экспериментте маңызды, бірақ басқа жасушалардағы FFAR4–TAB1–TAK1 нәтижелерін әр адам L-жасушасына көшіруге болмайды.
GPR119 2-моноацилглицеролдар мен олеоилэтаноламид OEA тәрізді липидтік лигандтарды таниды; Lauffer (2009) L-жасушалық үлгілерде OEA-тәуелді секреция көрсетті. Gs–цАМФ пен Gq–IP3 бөлек. Экзоцитозды күшейту кальцийсіз секрецияны дәлелдемейді. Тағамдық олеин қышқылы, лиганд түзілуі және зәйтүн майы бірдей дәрілік агонист емес. OEA липидтік аралық өнімдер арқылы синтезделеді және PPARα-байланысты тою биологиясы бар; тек GPR119 үшін бір қадамдық айналу емес.
SGLT1/SLC5A1 глюкоза мен галактозаны натриймен электрогенді тасымалдайды. Әдеттегі стехиометрия — бір глюкозаға екі натрий ионы:
Na/K-ATPase жанама қолдайтын натрий градиенті кіру мен деполяризацияны қамтамасыз етеді. Кальций кірісі секрецияны іске қосады. Gorboulev (2012) сіңу және инкретиндік жауаптағы маңызын көрсетті. GLUT2 және TAS1R2/TAS1R3 үлгіге тәуелді. Проксималды тасымалды тежеу ерте жауапты әлсіретіп, дисталды жеткізілу мен кеш секрецияны өзгертуі мүмкін; бүкіл GLP-1 міндетті жойылмайды.
PepT1/SLC15A1 ди- және трипептидтерді протонмен тасымалдап, электрогенді сезуге қатысады. CaSR — C класының GPCR-ы; сыртқы кальций және аминқышқылдық модуляцияға, әсіресе тиісті жағдайда ароматты аминқышқылдарға жауап береді. Глутамин, аргинин және ақуыз гидролизаттары тасымал, метаболизм және рецепторлар арқылы әсер етеді; бәрін бір CaSR қалтасына ғана жатқызу артық.
Ішектегі дәм сигналдары, соның ішінде Kokrashvili (2009), gustducin, PLCβ2, IP3 және TRPM5 қатысуын қарастырады. TRPM5 бірвалентті катиондарды өткізеді және кальций сигналынан кейін деполяризацияға көмектеседі; өзі кальций кіріс арнасы емес. Ащы TAS2R және тәтті TAS1R әсері рецептор, қосылыс және үлгіге тәуелді. Ащы тағам немесе полифенол осыдан адамдағы дәлелденген GLP-1 еміне айналмайды.
Кезбе жүйкенің сенсорлық нейрондары, түйінді ганглий, жалғыз жол ядросы NTS және басқа ми бағаны желілері ішектік, механикалық және метаболизмдік ақпаратты біріктіреді. GLP-1R-позитивті вагалдық популяциялардың, соның ішінде механосенсорлардың, қызметтері бөлек; бәрі L-жасушадан кейінгі бірдей ұштар емес.
Ми бағанындағы проглюкагон нейрондары GLP-1-ді жергілікті синтездеп, гипоталамус пен басқа аймақтарға проекцияланады. Trapp және Cork (2015) орталық жүйені сипаттайды. Brierley (2021) орталық және шеткері GLP-1 жүйелері тәуелсіз тізбектермен тамақтануды төмендете алатынын тәжірибеде көрсетті. Демек міндетті L-жасуша→вагус→PPG→гипоталамус тізбегі тым қатаң.
Area postrema және median eminence арнайы қолжетімді аймақтар береді. Дәрінің миға жетуі, экспозиция, рецептор таралуы және тосқауылдар маңызды. Фенестрлі капиллярлар табиғи пептидтің бүкіл миға еркін таралуын білдірмейді. OVLT-ді жеке дәлелсіз әмбебап GLP-1 анорексия қақпасы деуге болмайды. Sisley және Secher (2014) лираглутидтің нейрондық және аркуаттық жолдарын тәжірибеде анықтады, әр табиғи импульстің бірдей жолын емес.
POMC/CART, α-MSH–MC4R және NPY/AgRP энергия сигналдарын тікелей және жанама әсерлер, тежегіш интернейрондар мен аркуат ядродан тыс проекциялар арқылы біріктіреді. Лептин сигналдары мен резистенттілігімен ортақ желілер гормондарды теңестірмейді. Alhadeff (2012) тамақ қабылдауға қатысатын VTA және nucleus accumbens проекцияларын көрсетті. Сыйақы жүйесінің өзгеруі бүкіл дофаминді, гедондық тәбетті немесе «тағам шуын» жою емес. Бейресми сөз нақты синапс не барлық адамға ортақ жауапты анықтамайды.
GLP-1 вагалдық және энтеральдық бірігу, асқазан аккомодациясы және пилорикалық үйлесім арқылы босауын баяулата алады. Керілу механосенсорлық ақпарат қосады. IGLE — intraganglionic laminar endings, IMA — intramuscular arrays; «Intraneural Galvanic Mechanoreceptors» дұрыс анатомиялық санат емес. Әсер бастапқы босау, дәрі және экспозицияға тәуелді, ұзақ стимуляцияда әлсіреуі мүмкін. Баяу босау, азырақ тамақтану және жүрек айну байланысты, бірақ бөлек құбылыстар.
Тәжірибелік PKA/AMPK/eNOS/NO жолдары тамырлық гипотезалар ұсынады; mPTP үлгілері ишемиялық зақымды зерттейді. Тексерілмеген антиденелерге сүйеніп, әр эндотелий, тамырлық бұлшықет немесе жүрек жасушасында рецептор бар деуге болмайды. Кей дәрілердің жүрек-қантамырлық пайдасы клиникалық нәтижелер сынағымен анықталады, бір фосфорланудан шықпайды және тағамға автоматты көшірілмейді.
Crajoinas PKA-байланысты NHE3/SLC9A3 реттелуі мен бүйректік натрий тасымалын зерттеді. Түтікшелік деректер адамның GLP-1R нақты орнын шешпейді; тамырлық және жанама жолдар маңызды. Натрийурез, қысым өзгеруі және ұзақ бүйректік нәтижелер — бөлек дәлел деңгейлері. Түрге тән фосфосайттар мен апикалдық рецептор орналасуы жеке тексеруді қажет етеді.
NF-κB және NLRP3 эксперименттері қабынуды зерттеуге негіз болады, бірақ әр макрофагта қызметтік GLP-1R барын дәлелдемейді. NLRP3–caspase-1 тікелей IL-1β және IL-18 өңдеуіне қатысады; IL-6 мен TNF түгел осы кешен кесетін өнімдер емес. Салмақ, гликемия және тін стрессінің өзгеруі жанама әсер етуі мүмкін.
Бауыр әсерлеріне инсулин/глюкагон, май тінінен қышқылдардың аз жеткізілуі және энергия қабылдауы да кіреді. Гепатоцит GLP-1R экспрессиясы әдістемелік мәселе болып қалады. SREBP-1c пен AMPK гипотезалары табиғи гормон не қоспа MASH-ты емдейді деген дәлел емес. Newsome (2021), 2-фаза, семаглутидпен стеатогепатиттің жиірек басылуын көрсетті, бірақ фиброз сатысының топаралық маңызды жақсаруын анықтамады. Гистология, бауыр майы, трансаминазалар және клиникалық нәтижелер бөлек.
Лираглутид және семаглутид GLP-1R агонистері. Семаглутид DPP-4-ке төзімді аминқышқыл алмастыруын және альбуминмен байланысатын C18 май диқышқылы компонентін біріктіреді; лираглутидте C16 ацил тізбегі бар. Шамамен бір апталық жартылай өмір семаглутидке тән, барлық агониске емес. Тирзепатид GIP және GLP-1R-ға, ретатрутид GIP, GLP-1R және глюкагон рецепторына әсер етеді; бұлар «мидың үш тою рецепторы» емес.
| Жарияланған сынақ | Қатысушылар және әсер | Салмақ нәтижесі | Шектеуі |
|---|---|---|---|
| STEP 1, Wilding 2021 | 1961 ересек; семаглутид аптасына 2,4 мг; 68 апта | Орташа −14,9%, плацебо −2,4% | Өмір салты араласуымен бірге орташа нәтиже, жеке кепілдік емес |
| SURMOUNT-1, Jastreboff 2022 | Диабетсіз 2539 ересек; 72 апта | Тирзепатид аптасына 15 мг: −20,9%, плацебо −3,1% | 22,5% басқа бағалау стратегиясына жатады; SURPASS — бөлек диабет бағдарламасы |
| Ретатрутид 2-фаза, Jastreboff 2023 | 338 ересек; 48 апта | Аптасына 12 мг: −24,2%, плацебо −2,1% | Тарихи 2-фаза тағамдық теңдік пен қазіргі реттеуші мәртебені дәлелдемейді |
Бұл деректерді түсіндіруге арналған жарияланған режимдер, жеке дозалау нұсқауы емес. Әртүрлі сынақ пайыздарын салыстыру рандомизацияланған дәрі салыстыруы болмайды. Қазіргі көрсетілім мен тағайындау қолданыстағы өнім ақпаратына сүйенеді.
Ситаглиптин мен вилдаглиптин тәрізді DPP-4 тежегіштері ағзаның белсенді инкретиндерін, соның ішінде GIP-ті сақтайды. Олар үш каталитикалық қалдықты міндетті түрде ковалентті бөгемейді. Әдетте салмаққа бейтарап, өздік гипогликемия қаупі төмен, бірақ қатар ем әсер етеді. Экспозиция мен нәтижелер ұзақ агонизмнен өзгеше; жүрек-қантамыр және жүрек жеткіліксіздігі деректері дәріге қарай ерекшеленеді.
Инулин, резистентті крахмал, ішінара гидролизденген гуар шайыры және кей β-глюкандар ферментация, тұтқырлық, микробиота және көтерімділік бойынша әртүрлі. Cani (2009) GLP-2 және ішек өткізгіштігі туралы тышқан жұмысы микробиота–метаболизмдік қабыну байланысын қолдайды, адам L-жасушаларының кепілді көбеюін емес. Талшық бірнеше тағамдық мақсатқа пайдалы болуы мүмкін, бірақ GLP-1-ді «барынша арттыру» үшін әмбебап 15–25 г қоспа дәлелденбеген. Бактериялардың өзара қоректенуі Bifidobacterium, Faecalibacterium және Akkermansia-ға бірдей бутират түзілуін телуге мүмкіндік бермейді.
Мықын ішектік тежегіш нутриент, гормон және моториканы байланыстырады, Maljaars (2008) оны сипаттайды. Phaseolus vulgaris амилаза тежегіштері және Morus alba 1-дезоксиноджиримицині DNJ тиісті өнімдерде көмірсу қорытылуын өзгертеді. SGLT1 моносахаридтерді тасымалдайды, қорытылмаған олигосахаридтерді емес. Баяу қорыту дисталды глюкоза жеткізілуін не ферментацияны өзгерте алады, бірақ әр экстракт қуатты SGLT1–GLP-1 толқынын тудыратынын дәлелдемейді. Стандарттау, ферменттік белсенділік және адам сынақтарының нәтижелері маңызды.
Lu (2009) берберинді стрептозотоциндік диабеті бар егеуқұйрықтарда зерттеді: бұл механизмдік бастама, әмбебап адам AMPK–GCG–микробиота тізбегі емес. Экспозиция мен әрекеттесулер берберин және дигидроберберин шолуында қарастырылған. «Инкретиндік жиынтықтағы 500 мг күніне екі рет» клиникаға дейінгі тәжірибеден шықпайды.
Зәйтүн майы олеин қышқылы және басқа құрамдарымен рацион бөлігі болуы мүмкін. Липидтік секреция мен OEA синтезі 15–20 мл-ді рецепторға бағытталған емдік дозаға айналдырмайды. Салмақ нәтижесінде қосымша энергия есептелуі керек.
Ақуызды алдын ала қабылдау, соның ішінде сарысу ақуызы, шағын бақыланған адам зерттеулерінде инкретин, инсулин, асқазан босауын және тамақтан кейінгі гликемияны өзгертті. Мөлшер, уақыт, бастапқы диабет, тағам құрамы және қосымша энергия әртүрлі. 15–20 г-ды 15–30 минут бұрын алу — ықтимал зерттелетін стратегиялар тобы, әмбебап нұсқау немесе глюкоза көтерілуін толық жою емес. Аминқышқылдар инсулин мен глюкагонға тікелей де әсер етеді; бүкіл өзгерісті GLP-1-ге жатқызуға болмайды.
Jakubowicz (2014) жедел айқаспалы сынақта 15 адамға 50 г сарысу ақуызын зерттеді. Бұл кез келген төмен дозаны дәлелдемейді.
| Араласу | Ықтимал жол | Нені анықтау қажет |
|---|---|---|
| Ферменттелетін талшық | SCFA, эпителий метаболизмі, FFAR | Нақты өнімнің адамдағы гормондық/клиникалық нәтижесі және көтерімділігі |
| Бұршақ/тұт экстракты | Қорыту және дисталды жеткізілу | Стандартталған белсенділік, тиісті сынақтар |
| Берберин | Клиникаға дейінгі секреция, микробиота, метаболизм | Адам механизмі, әрекеттесулер, пайда |
| Зәйтүн майы | Липид сенсорлары мен лигандтар | Тағамды алмастыру не энергия қосу; әмбебап GLP-1 дозасы жоқ |
| Алдын ала ақуыз | Пептид/аминқышқыл, инсулин, моторика | Мөлшер, уақыт және тұрақты клиникалық пайда |
BMAL1, CLOCK және PER энтероэндокриндік қызметті үлгілерде циркадтық биологиямен байланыстырады. Адамдағы таңғы-кешкі жауапқа ұйқы, тағам реті мен құрамы және глюкоза көтерімділігі де ықпал етеді. Әмбебап таңғы GCG/SGLT1 максимумы немесе барлығына бір уақыттық нұсқау шықпайды.
Grant (2006) TCF7L2, соның ішінде rs7903146 вариантын 2-типті диабет қаупімен байланыстырды. Бұл TT тасымалдаушыларына көбірек талшық керек немесе ішек проглюкагоны міндетті басылады деген сөз емес. GLP1R rs10305492 және DPP4 варианттары кей белгілерге әсер етуі мүмкін; рецептор өзгерісі автоматты DPP-4 ыдырау өзгерісі емес. Ассоциация, қызмет және ем жауабын болжау бөлек дәлелді қажет етеді.
Бақылау нақты сұраққа сай: симптомдар, глюкоза/HbA1c, салмақ, рацион толықтығы және тиісті бүйрек/бауыр қаупі. Тамақтан кейінгі өзгергіштік және CGM сенсорлық деректердің шегін түсіндіреді. CGM GLP-1-ді өлшемейді, оның делдалдығын дәлелдемейді және талшық не ақуыз қосқан әр адамға міндетті емес. Белгісіз «жиынтық» алдында панкреатикалық ферменттерді бәріне тексеру белгіленбеген. Панкреатит белгілері, айқын асқазан-ішектік көтере алмау және өте баяу босау клиникалық бағалауды қажет етеді. Қарсы көрсетілім нақты араласуға қатысты; ойық жаралы колит барлық аталған тағам мен талшыққа ортақ тыйым емес.
Бұл — 2026 жылғы 8 қазанда қолжетімді бастапқы жазбалар мен жарияланымдар арқылы даулы құрылымдық идентификаторлар, механизмдер және сынақ нәтижелері нысаналы тексерілген баяндаушы ғылыми шолу. Ол жүйелі шолу, тәуелсіз GRADE бағасы, клиникалық валидация немесе сыртқы рецензия емес. Тағамдық секреция, тәжірибелік жолдар және дәрілік нәтижелер өз дәлел деңгейінде сақталған. Мақсат — тексерілмеген комбинациямен гормон санын барынша арттыру емес, тиісті тағамдық немесе клиникалық нәтиже.
Оған дәлел жоқ: экспозиция мен клиникалық деректер өзгеше.
Ол N-ұштық дипептидті алып, кәдімгі инкретиндік белсенділікті айқын төмендетеді.
Жоқ. Орталық синтез бен шеткері сигнал тәуелсіз әрекет ете алады.
Жоқ. Өздік қауіп төмен, бірақ қатар дәрілер мен клиникалық жағдай маңызды.
Келтірілген ассоциациялар генотиптік дозалауды дәлелдемейді.