Лептинге төзімділік: SOCS3, POMC және гипоталамус — NutriFit
Лептинге төзімділік: гипоталамус қабынуы, SOCS3 және POMC
Лептин мен LEPR құрылысы, JAK2/STAT3, PI3K/FoxO1, AMPK, POMC өңделуі және MC4R. SOCS3, PTP1B, TCPTP, глия, тор стрессі мен миға жеткізілу сигналға қалай әсер етеді; жануар тәжірибесі, адам семіздігі және салмақ тастаудан кейінгі бейімделу айырмасы.
Лептин май тініндегі энергия қорын тамақ қабылдауын, энергия шығынын және нейроэндокриндік бейімделуді реттейтін нейрондық жүйелермен байланыстырады. Кең таралған семіздікте қандағы лептин жиі жоғары болғанымен, қосымша гормон күтілгеннен әлсіз әсер береді. Лептинге төзімділік осы жауаптың төмендеуін білдіреді. Бұл бір қан талдауымен қойылатын жалғыз диагноз емес, бірнеше үдерістің жиынтығы. Туа біткен лептин тапшылығы, рецептор ақауы, тышқандардағы диетаға байланысты семіздік және адам салмақ тастағаннан кейінгі бейімделу — бөлек жағдайлар.
Мақала гормон мен рецептордан жасушаішілік жолдарға, доға тәрізді ядроның нейрондарына және сигналды әлсірететін механизмдерге өтеді. Молекулалық себептіліктің басым бөлігі жасушалар мен кеміргіштерден алынған. Адамдағы эндокриндік және бейнелеу зерттеулері тиісті байланыстарды көрсетеді, бірақ әр науқаста толық молекулалық тізбекті дәлелдемейді. Эксперименттік нысана өздігінен емдеу хаттамасын белгілемейді.
1. Молекула және эндокриндік сигнал
Тышқанның ob гені мен оның адамдағы LEP гомологының клондалуы май тінінің дене массасын эндокриндік реттеуге қатысатынын көрсетті (Zhang et al., 1994). Адамның LEP гені 7q32.1 аймағында орналасқан. 167 аминқышқылды прекурсордан 21 қалдықты сигналдық пептид бөлінгенде, шамамен 16 кДа болатын 146 қалдықты жетілген лептин қалады. Қандағы гормонның көп бөлігін ақ адипоциттер бөледі. Май массасымен қатар ағымдағы энергия теңгерімі, инсулин, жыныс және тәуліктік ырғақтар да секрецияға әсер етеді.
Лептиннің цитокиндерге тән төрт спиральді құрылымы бар. 1AX8 — лептин-E100 молекуласының рентгендік құрылымы, толық рецептор кешені емес (Zhang et al., 1997). Дисульфидтік көпір жетілген лептиндегі Cys96 мен Cys146 қалдықтарын байланыстырады; прекурсор мен жетілген ақуыздың нөмірлеуін араластыру қате туғызады. Көпір конформацияны қолдайды, бірақ жеке мутациялардың әсерін толық белсенділік жоғалады деп болжаудың орнына тәжірибеде бағалау қажет.
Қанда бос лептин де, еритін LEPR-мен байланысқан лептин де болады. Сондықтан жалпы концентрация миға қолжетімділікке тең емес. Considine et al. (1996) май массасымен байланысты және семіздіктегі жоғары концентрацияларды тапты. Топтық орташа көрсеткіштер әмбебап референстік шектер емес; сарысудағы жоғары лептин гипоталамустың STAT3 белсенділігін тікелей өлшемейді.
2. LEPR изоформалары және құрылысы
Tartaglia et al. (1995) анықтаған рецептор I класты цитокиндік рецепторларға жатады; адамның LEPR гені 1p31.3 аймағында орналасқан. Мембраналық изоформалардың сыртқы байланыстыру аппараты ортақ, ал жасушаішілік бөліктері әртүрлі. Ұзын LepRb канондық JAK2–STAT сигналын қамтамасыз етеді. Қысқа формалар таралуға, ішке жұтылуға және басқа қызметтерге қатысады; олар жай ғана белсенді емес көшірмелер емес.
Еритін рецептор балама сплайсингтен немесе эктодоменнің үзілуінен пайда болуы мүмкін; бұл жолдардың үлесі түрлерге қарай өзгереді. Қысқа изоформалар ми тосқауылы арқылы жеткізуде зерттелгенімен, адамның барлық тасымалын тек LepRa/LepRc-ге телу дәлел шегінен асады.
Сыртқы құрылымда CRH1/CRH2 цитокиндік рецептор гомологиясы аймақтары, иммуноглобулинге ұқсас домен және фибронектин модульдері бар. CRH2 байланысуға қатысады, ал домендердің орналасуы белсенді кешен құруға мүмкіндік береді. Mancour et al. (2012) сигналдық кешен архитектурасын зерттеді. PDB 3V6O — рецептор фрагменті мен антидененің рентгендік құрылымы, толық LepRb-дің крио-ЭМ құрылымы емес: бастапқы сілтемеде бөлек зерттеулер шатастырылған. Бұл фрагмент тірі нейрон мембранасындағы бір әмбебап стехиометрияны дәлелдемейді.
3. JAK2, STAT3 және қатарлас тармақтар
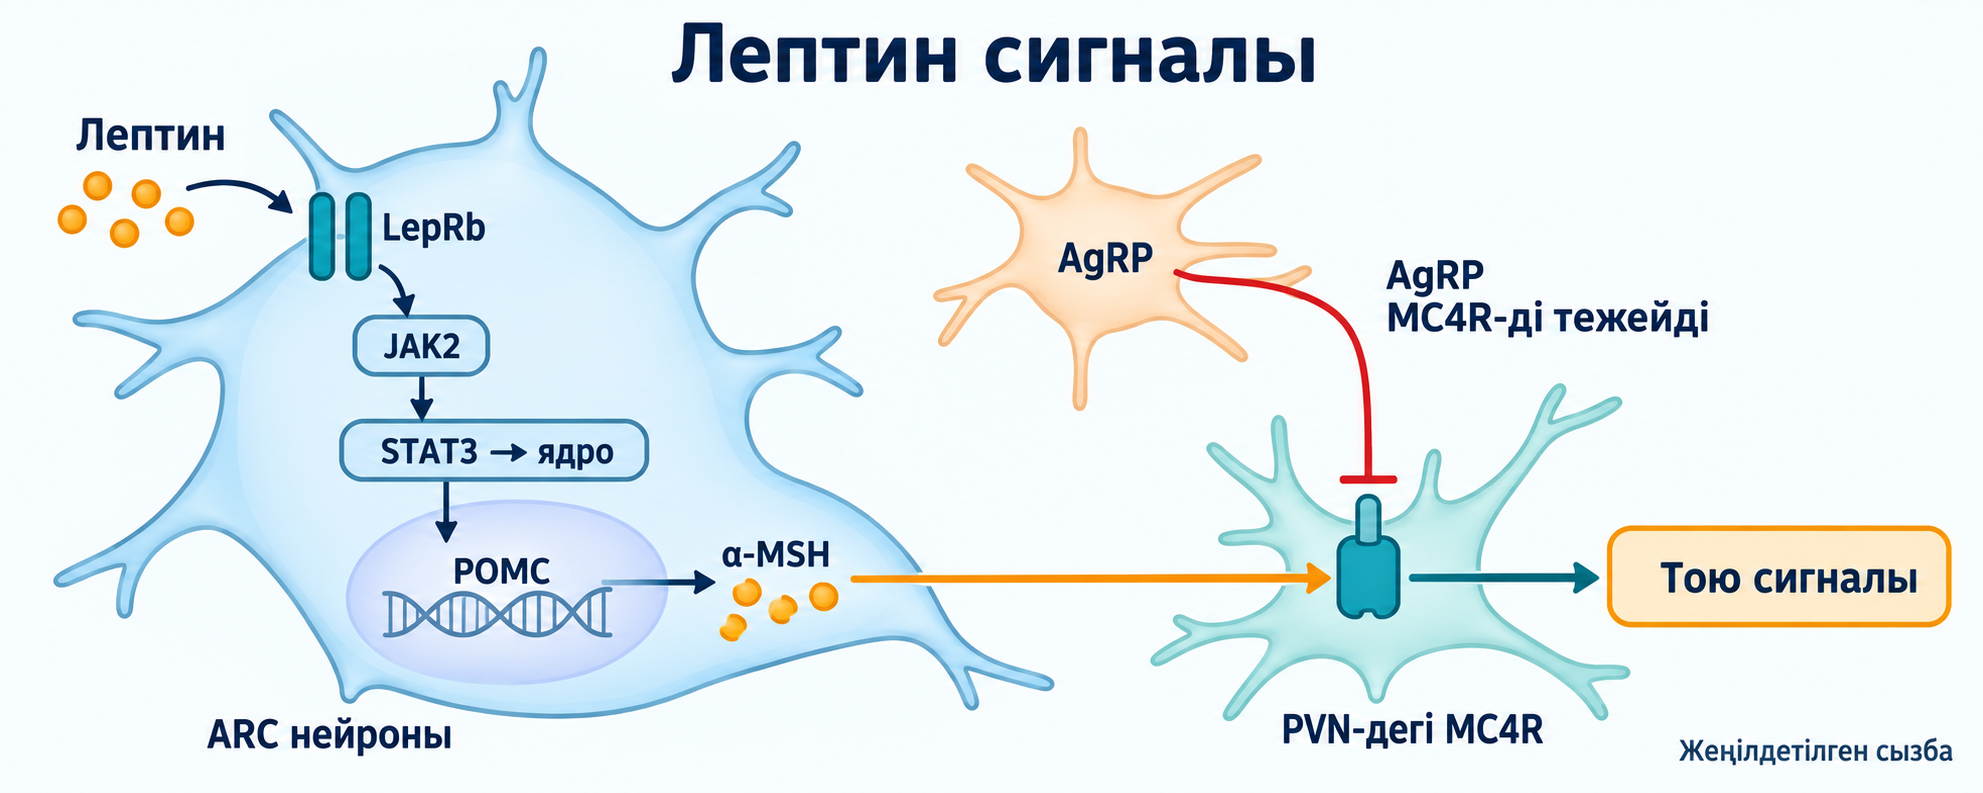
LepRb-де өзінің тирозинкиназалық белсенділігі жоқ. Мембранаға жақын мотивтер JAK2-мен байланысады. Лигандқа тәуелді қайта орналасу киназаның белсенуін, белсендіру ілмегіндегі Tyr1007/Tyr1008 фосфорлануын, кейін рецептордағы фосфотирозиндік қону орындарының түзілуін қолдайды. LepRb-дің дәстүрлі нөмірлеуінде Tyr1138 STAT3-ті тартады, Tyr1077 STAT5-пен, ал Tyr985 SHP2 және SOCS3-пен байланысты. Қалдық нөмірін нақты түр мен тізбекке қатысты түсіндіру керек.
Фосфат тасымалының жалпы сызбасы:
Protein-Tyr-OH+ATPkinaseProtein-Tyr-OPO32−+ADP.
Бұл — реакция сызбасы; JAK2 жылдамдығының өлшемі де, Km он бес есе төмендейді деген дәлел де емес. STAT3-тің Tyr705 бойынша фосфорлануы димер түзілуіне және Socs3 пен энергияға байланысты нейрондық бағдарламаларды қамтитын транскрипциялық реттеуге мүмкіндік береді. Тышқандардағы рецептор орнының мутациясы жолдың маңызын көрсетеді (Bates et al., 2003). Оларда энергия теңгерімі қатты бұзылады, бірақ db/db фенотипі толық қайталанбайды: репродуктивтік және өзге лептин әсерлерінің бір бөлігін басқа жолдар қамтамасыз етеді.
SHP2 рецепторды Ras–Raf–MEK–ERK-мен байланыстырады; STAT5 басқа транскрипциялық тармақты құрайды. Олардың маңызы жасуша популяциясына қарай өзгереді. Барлық LepRb нейрондарында бірдей нәтиже беретін жалғыз сызықтық жол жеткіліксіз модель болады.
4. PI3K, FoxO1, PDE3B және mTOR
Лептин мен инсулин сигналдары IRS/PI3K деңгейінде түйіседі. PI3K PIP2-ні PIP3-ке айналдырып, PDK1 мен Akt-тың мембранаға тартылуын жеңілдетеді. Белсенді Akt FoxO1 орналасуын өзгертіп, 14-3-3 байланысуын және ядродан шығуын қолдай алады. Гипоталамустық тәжірибелер FoxO1-ді энергия күйімен және Agrp/Pomc экспрессиясымен байланыстырады (Kitamura et al., 2006; Kim et al., 2006). STAT3 — транскрипциялық фактор; ол FoxO1-ді тікелей фосфорлайтын киназа емес.
PDE3B циклдік AMP-ті гидролиздейді және кейбір лептиндік жауап модельдеріне қатысады. Akt–TSC–Rheb–mTORC1 сигналды S6K және 4E-BP1 арқылы ақуыз синтезімен байланыстырады. Алайда mTOR әсерлері уақытқа және нейрон түріне тәуелді: тұрақты белсену сезімталдықты міндетті түрде жақсартпайды. Жануар миындағы PI3K немесе mTOR манипуляциясы адам үшін қауіпсіз араласуды дәлелдемейді.
5. AMPK және гипоталамустық липид сезу
Лептин эксперименттік гипоталамус жүйелерінде AMPK-ті тежейді, ал бұлшықетте AMPK белсенуі болуы мүмкін (Minokoshi et al., 2004). AMPK-тің ацетил-КоА-карбоксилазаға тежегіш әсерін жою малонил-КоА түзілуін арттыра алады:
Acetyl-CoA+HCO3−+ATPACCMalonyl-CoA+ADP+Pi.
ACC — ацетил-КоА-карбоксилаза, Pi — бейорганикалық фосфат. Бұл көміртек алмасуын липид сезумен байланыстырады; тәбетті есептейтін формула емес. Нейрондық CPT1c көбіне малонил-КоА сенсоры ретінде қарастырылады, оны кәдімгі митохондриялық CPT1 ацил тобы тасымалымен теңестіруге болмайды. Симпатикалық шығулар UCP1-тәуелді термогенезге әсер етуі мүмкін, бірақ оның шамасын бір лептин өлшемінен анықтау мүмкін емес.
6. Доға тәрізді ядро және меланокортиндік желі
Доға тәрізді ядро — ARC — ортаңғы төмпешік пен үшінші қарынша жанында орналасқан. Фенестрленген тамырлар мен танициттік тосқауылдар реттелген сенсорлық қолжетімділік береді; олар барлық плазмалық ақуыздың әр ARC нейронына еркін кіруін білдірмейді.
POMC және AgRP/NPY/GABA популяциялары маңызды әрі әртекті. POMC/CART — қолайлы классикалық қысқарту, бірақ жасушалардың рецепторлары мен пептид жиынтықтары бірдей емес. Лептин кейбір POMC нейрондарын тікелей және желі арқылы белсендіреді (Cowley et al., 2001), басқа жасушаларда иондық токтар мен тежегіш кірістерді өзгертеді. KATP арналары кейбір жауаптарға қатысады; бекітілген мембраналық потенциал ығысуы немесе сексен пайыздық тежелу бүкіл популяцияны сипаттай алмайды.
POMC — бірнеше пептидтің прекурсоры. PCSK1 кодтайтын PC1/3 ACTH түзілетін бастапқы ыдырауды бастайды; PC2 өңдеуді жалғастырады, карбоксипептидаза E негізгі қалдықтарды алып тастайды, PAM амидтенуге қатысады. Кейінгі ацетилдену α-MSH қасиеттерін өзгертеді. Сондықтан PC1/3 жалғыз өзі POMC-ті жетілген α-MSH-ке айналдырмайды. Әр ацетилденген форма үшін аффинділіктің әмбебап отыз-қырық есе өсуі де дәлелденбеген.
α-MSH PVN және басқа аймақтардағы MC4R-ді белсендіреді. Канондық Gs–аденилатциклаза–cAMP жолы қатысқанымен, MC4R физиологиясы бір PKA/TRPC5 жолынан кең. AgRP — антагонист, ал тиісті жүйелерде кері агонист (Ollmann et al., 1997). NPY өз рецепторларымен, GABA тежегіш синапстармен әсер етеді. Кері агонизм белсенділікті базалық деңгейден төмендетеді; cAMP концентрациясы теріс болмайды.
Тышқандардағы Mc4r бұзылысы және адамдағы POMC, PCSK1, MC4R мутациялары желінің маңызын көрсетеді (Huszar et al., 1997; Krude et al., 1998; Jackson et al., 1997; Farooqi et al., 2003). Сирек моногендік жағдайлар кең таралған семіздігі бар барлық адамда MC4R толық өшеді дегенді дәлелдемейді.
7. SOCS3: кері байланыс және тежелу
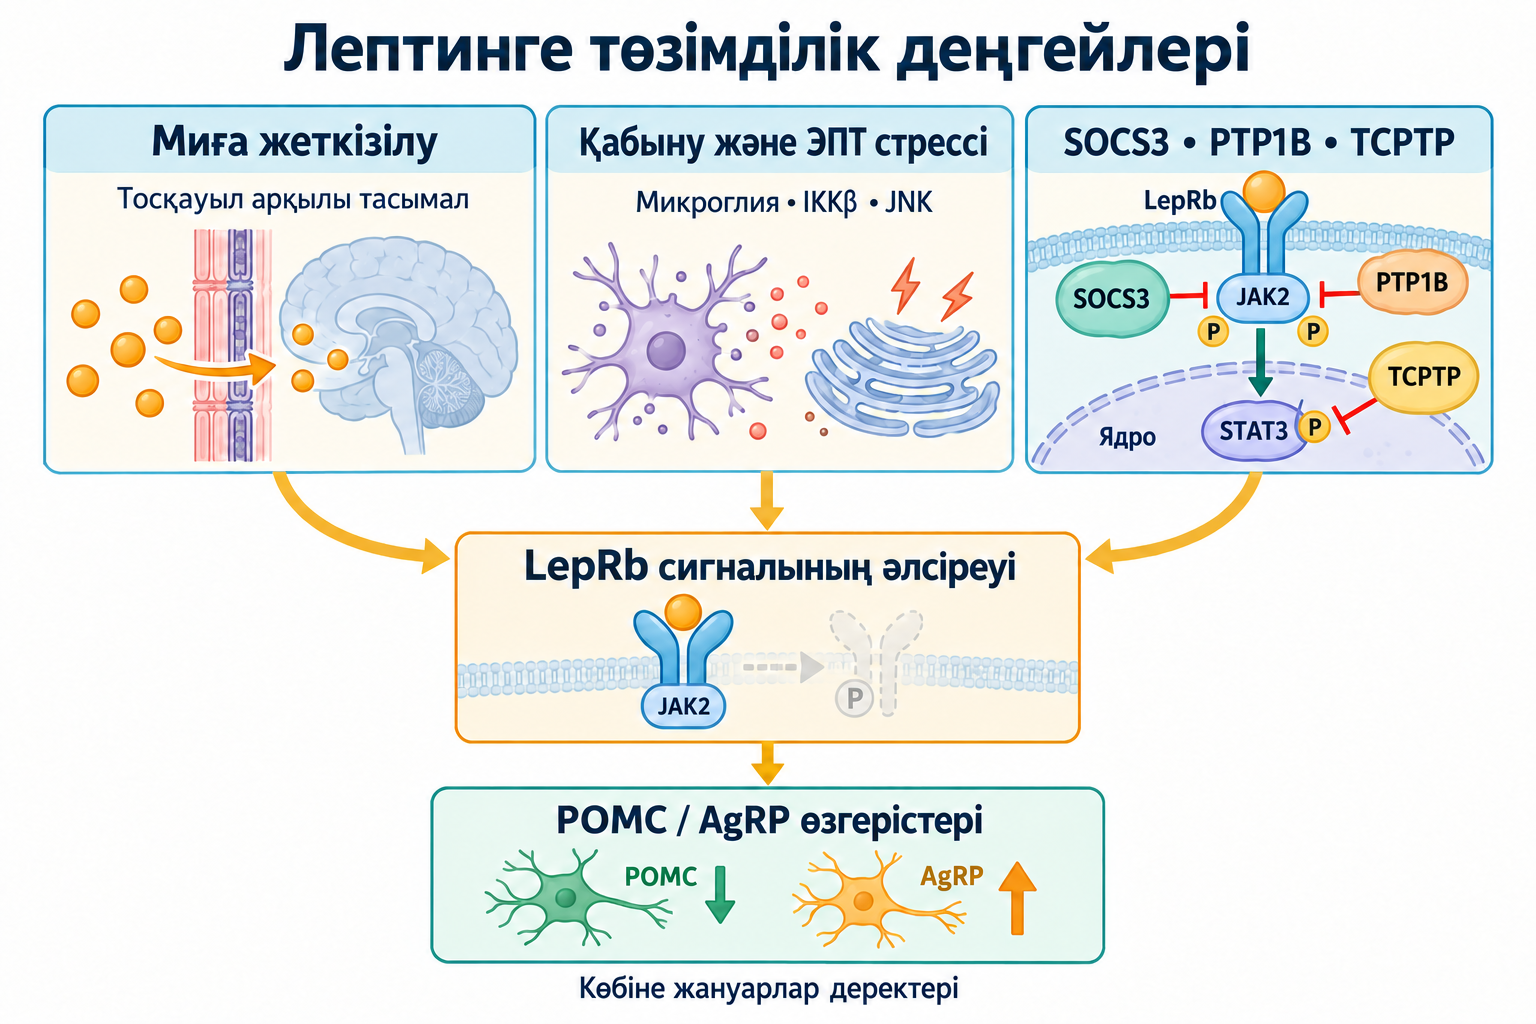
STAT3 SOCS3 түзілуін қоздырып, теріс кері байланыс қалыптастырады. SH2 домені фосфотирозиндік мотивтерді таниды, киназаны тежейтін аймақ JAK тежелуіне қатысады, SOCS-бокс E3 убиквитинлигаза аппаратын тартады. Бұл қызметтер сигналдың күші мен ұзақтығын шектейді. E3 тартылуы әр жауаптан кейін бүкіл LepRb/JAK2 кешені міндетті түрде жойылады деген сөз емес.
Kershaw et al. (2013) JAK2-нің субстрат байланыстыратын аймағының жабылуын көрсетті. 4GL9 құрылымында LepRb емес, SOCS3–JAK2–gp130 бар. SOCS3-ті ATP қалтасының тығыны ретінде сипаттауға болмайды (Babon et al., 2012).
Тышқанның POMC экспрессиялайтын жасушаларында Socs3 жойылуы лептинге сезімталдықты және метаболикалық көрсеткіштерді жақсартты (Kievit et al., 2006). Бұл — модель шеңберіндегі себепті дәлел; жалпы басудың қауіпсіздігін дәлелдемейді, өйткені SOCS3 көптеген иммундық цитокиндік сигналды да шектейді.
8. PTP1B және TCPTP: әртүрлі орындар
PTPN1 кодтайтын PTP1B эндоплазмалық тордың цитоплазмалық бетіне бекітілген. Каталитикалық домені цитозольге бағытталған; Cys215 фосфофермент аралық өнімін түзеді, Asp181 қышқыл-негіздік катализге қатысады. Ол JAK2-ні дефосфорлап, лептин сигналын шектей алады. Эндосома–тор байланыстары субстратқа қолжетімділікті түсіндіреді, бірақ әр байланыс рецептордың жойылуын білдірмейді. Тышқан нейрондарындағы жою дене массасына, майға және лептин әсеріне ықпал етті (Bence et al., 2006).
PTPN2 кодтайтын TCPTP-нің бірнеше изоформасы бар; ядролық TC45 STAT3-ті дефосфорлай алады. Loh et al. (2011) семіздіктегі гипоталамустық TCPTP өсуін және PTP1B-мен бірлескен әсерін зерттеді. Бір реттеуші рецепторға байланысқан киназа маңында, екіншісі транскрипциялық эффекторда әрекет етеді. Гиперлептинемия, қабыну және фосфатаза өзгерістері жауаптың әлсіреуін қолдауы мүмкін, бірақ олардың реті мен үлесі модельге байланысты.
Loh et al. (2011) жұмысына 2022 жылы түзету жарияланды: Figure 4A суретіндегі актиннің бақылау блоты төңкеріліп, p-JAK2 үшін тубулин бақылауы ретінде қате қайта қолданылған. Авторлар дұрыс бақылауды беріп, ғылыми қорытындылар өзгермегенін хабарлады (Loh et al., 2022). Бұл сол суретті бағалағанда ескерілуі тиіс; түзету адамды емдеудің тиімділігін дәлелдемейді.
Екі фосфат алынғанда екі су молекуласы жұмсалып, екі Pi түзіледі. Бұл бастапқы теңестірілмеген реакцияны түзетеді.
9. Қабыну, глия және эндоплазмалық тор стрессі
Thaler et al. (2012) майы көп тамақтану басталғаннан кейін кеміргіштерде ерте гипоталамустық қабынуды және адамдарда MRI арқылы семіздікпен байланысты тапты. MRI SOCS3-ті немесе жеке POMC нейронының сезімталдығын өлшемейді. Глия жауабы бастапқыда тінді қорғауы мүмкін; ұзақ өзгерістер кез келген глиозды қайтымсыз етпейді.
Milanski et al. (2009) қаныққан май қышқылдарын эксперименттік гипоталамустық TLR4-тәуелді қабынумен байланыстырды. Бірақ пальмитатты TLR4-тің дәлелденген тікелей лиганды деуге болмайды: Lancaster et al. (2018) рецепторлық байланысу мен TLR4-ке тәуелді метаболикалық қабыну бейімділігін ажыратты. Макрофагтағы нәтижелер микроглияның барлық мәселесін шешпейді.
IKKβ IκB-ді фосфорлап, NF-κB-ді босатады. JNK стрессті AP-1 және IRS сигналдарының өзгерістерімен байланыстырады. Zhang et al. (2008) гипоталамустық IKKβ/NF-κB-дің тышқан энергия теңгеріміне қатысуын көрсетті. Нақты IRS1 серинінің мәні түр мен жағдайға тәуелді; Ser307 әмбебап PI3K өшіргіші емес. Қабыну жолдары SOCS3-ті лептиннен тәуелсіз қоздыра алады.
Эндоплазмалық тор секреторлық және мембраналық ақуыздарды бүктейді әрі өзгертеді. Липид құрамы, кальций гомеостазы және синтез жүктемесі оның қызметін бұза алады. UPR құрамына PERK–eIF2α–ATF4, IRE1–XBP1 және ATF6 кіреді. Алғашында бейімделуге қызмет ететін жүйелер ұзақ стресс кезінде CHOP, JNK және жасуша өліміне қосылуы мүмкін. Ozcan et al. (2009) тор стрессін тышқан лептинге төзімділігімен байланыстырды. Гликозилдену, ERAD және рецептор тасымалының ақаулары ықтимал құрамдастар, бірақ барлық фенотиптің дәлелденген жалғыз себебі емес.
Астроциттік байланыстар, микроглия қызметі, синапстық құрылым және POMC жасушаларының сақталуы модельді бір рецептордан кеңейтеді. Басқа нейроқабыну жолдарымен салыстыру ортақ глия үдерістерін лептинге тән сигналдан ажыратуға көмектеседі.
10. Миға жеткізілу
Тығыз эндотелий байланыстары лептиннің еркін диффузиясын шектейді. Қанығатын тасымал, аймақтық тосқауылдар, танициттер және рецепторлық үдерістер жеткізілуге қатысады. Шеткері концентрация жоғарылағанда жұлын-ми сұйықтығы мен қанның арақатынасы төмендеуі мүмкін, бірақ бұл сұйықтық ARC интерстицийіне тең емес. Барлық адамға ортақ Km, плато шегі немесе мидың лептиндік ашығуы диагнозы анықталмаған.
Қанығатын байланыстың түсіндірме моделі:
J=K1/2+CJmaxC.
J — тасымал ағыны, Jmax — сол бірліктердегі шекті мәні, C — концентрация, K1/2 — жартылай максималды ағын беретін концентрация. Бұл клиникалық калькулятор емес; параметрлер нақты эксперименттік жүйеде өлшенуі керек.
Banks et al. (2004) триглицеридтердің лептин тасымалын тәжірибеде тежейтінін көрсетті. Banks et al. (2018) орталық лептин және инсулин рецепторлары әсерлерін де зерттеді. Бұдан VLDL эндотелийді физикалық бітейді немесе барлық инсулин жолдары сақталады деген қорытынды шықпайды. Клиникалық көрсетіліммен триглицеридті азайту мидағы сигналды белгілі лептин шегіне дейін қалпына келтірудің дәлелі емес.
11. Адам: семіздік, тапшылық және салмақ тастау
Кең таралған семіздікте жоғары лептин әртүрлі тамақтану мінез-құлқымен қатар жүреді; тұрақты бақыланбайтын гиперфагия міндетті емес. Heymsfield et al. (1999) кейбір қатысушыларда дозаға байланысты салмақ жауабын тапты, сондықтан сынақ толық теріс болған жоқ. Жауаптар әртүрлі болды, ал зерттеу семіздіктің әмбебап емін бекітпеді.
Туа біткен тапшылықты толықтыру — басқа жағдай: Farooqi et al. (1999) лептині жоқ баладағы айқын әсерді сипаттады. Лиганд қосу рецептор ақауын түзетпейді. Бұл популяцияларды салыстыруда әлсіз сигналдың себебін анықтау қажет.
Энергия шектелгенде лептин май массасынан жылдам төмендеуі мүмкін. Салмақ тастағаннан кейін бұл ашығумен, симпатикалық және қалқанша без өзгерістерімен, бұлшықет тиімділігінің артуымен қатар жүреді. Rosenbaum et al. (2005) осындай бейімделулерді, Rosenbaum et al. (2008) тағам бейнелеріне ми жауабын зерттеді. «Лептиндік шұңқыр» — әмбебап шегі бар қалыптасқан синдром емес, метафора. fMRI өзгерісі ашығу толық жойылды немесе салмақтың қайтуы дәлелді түрде алдын алынды дегенді білдірмейді.
Айқын энергия тапшылығындағы төмен лептин репродуктивтік жүйені аралық нейрондық тізбектер арқылы басуға қатыса алады; бұл тек GnRH-ке тікелей әсер емес. Қалқанша без, симпатикалық, жыныстық және HPA жауаптары тапшылық ұзақтығы мен популяцияға тәуелді. Энергия шығынының әмбебап 300–500 ккал/тәулік түсуі немесе эндокриндік күйреу жеке айырманы бұрмалайды. Салмақ қайтуы ықтималдық сипатта: орта, қолдау, мінез-құлық және ем де әсер етеді; бір гормон оны міндетті етпейді.
12. Эксперименттік ем нысаналары
4-PBA және TUDCA химиялық шаперондары, тор стрессін төмендету, SOCS3 реттеушілері және фосфатазалар механизмді зерттеуге көмектеседі. Тышқан жауабының жақсаруы адамдағы тағамдық қоспа әсерін дәлелдемейді.
Tripterygium wilfordii-ден алынатын целастрол мен витаферин A тышқан лептинінің сенситайзерлері ретінде зерттелді (Liu et al., 2015; Lee et al., 2016). Әсер модельге тәуелді және бір тікелей нысанаға сыймайды. Жануардың азық қабылдауы мен салмағындағы үлкен өзгеріс адам дозасын анықтамайды; ашваганда сығындысы тазартылған витаферин A емес. Урсол қышқылы жасушалық жүйелерде метаболикалық белсенді тритерпен және фермент тежегіші ретінде зерттеледі. Күніне бірнеше рет 150–300 мг қолданылатын лептинге төзімділікті емдеу режимі бекітілмеген.
DHA мембрана биологиясына қатысып, D сериялы резольвиндер мен протектиндер сияқты қабынудың басылу медиаторларына прекурсор болады. MFSD2A LPC-пен байланысқан ұзын тізбекті май қышқылдарын тасымалдайды (Nguyen et al., 2014). Триглицеридтік немесе этилэфирлік DHA капсуласы оның тікелей субстраты емес. Cintra et al. (2012) жануар модельдерінде қанықпаған майларды зерттеді; бұл адамның гипоталамустық STAT3 қалпына келуін дәлелдемейді. Микроглияның M1/M2 атаулары оның күйлерін тым қарапайым етеді.
Куркуминнің эксперименттік қабынуға қарсы әсерлері бар. Кейбір препараттардың жоғары биожетімділігі адам ARC аймағында емдік концентрация, IKKβ/JNK тежелуі немесе төзімділіктің жойылуын дәлелдемейді. Тауринге де осы шек қатысты: оның эндогендік қызметі кез келген дозаны осы жағдайдың дәлелденген химиялық шапероны етпейді.
13. Фруктоза, белсенділік және ұйқы
Бауырдағы фруктоза алмасуына KHK қатысады; тиісті жүктемеде липогенез бен VLDL бөлінуі өсуі мүмкін. Shapiro et al. (2008) егеуқұйрықтағы фруктозамен тамақтану мен лептин жауабын зерттеді. Бұл барлық жемістен бас тарту адамның тосқауылын толық түзететінін көрсетпейді. Диета әсері энергияға, тағам формасына және оның орнына не қолданылғанына тәуелді. Уақытпен шектелген тамақтану, қозғалыс және триглицеридті төмендету метаболикалық мақсаттарға қызмет етуі мүмкін, бірақ 16/8, Zone 2 немесе 1,0 ммоль/л-ден төмен триглицерид мақсаты лептинді қалпына келтірудің әмбебап тексерілген хаттамасы емес.
Ұйқы тәбетпен және эндокриндік реттеумен байланысты. Taheri et al. (2004) когорталық байланыстарды, Spiegel et al. (2004) дені сау жас ерлердің қысқа ұйқы шектеуін зерттеді. Бұл дизайндар әртүрлі; гормон өзгерістерінің пайызы бәріне таралмайды және рецептордың қалпына келуін дәлелдемейді. Тәуліктік ауытқу тамақтануға да байланысты. Нақты шың сағаттары, ұйқыдан төрт сағат бұрын міндетті кешкі ас және көк жарықты бөгеу SOCS3-тәуелді төзімділікті жоятын тәсіл ретінде дәлелденбеген. Циркадтық сигналдар мен мелатонин ырғақтарды түсіндіруге көмектеседі, бірақ лептиндік жауап зерттеуін алмастырмайды.
14. Дәлел деңгейлерін салыстыру
Деңгей
Не зерттеледі
Адамға қолдану шегі
Молекула және құрылым
Лептин, LEPR, JAK2, SOCS3, фосфатазалар
Кешен фрагменті тұтас тірі нейронды сипаттамайды
Нейрондық жол
STAT3, PI3K/FoxO1, POMC өңделуі, MC4R
Популяциялар мен стимул ұзақтығы әртүрлі
Глия және тор
IKKβ/NF-κB, JNK, UPR, синапстық өзгерістер
Себепті тәжірибелер көбіне кеміргіштерде
Тосқауыл
Қанығатын тасымал және липид әсерлері
Әмбебап клиникалық ағын шегі жоқ
Адамның салмақ тастауы
Ашығу, энергия шығыны, гормондар, fMRI
Жалғыз синдром немесе міндетті салмақ қайтуы емес
Араласу
Тапшылықты толықтыру және сенситайзер тәжірибелері
Популяциялар бөлек; тышқан дозасы адамға тағайындау емес
Механизм картасы сұрақ қояды: гормон жеткіліксіз бе, жеткізілу өзгерген бе, жасушаішілік жауап әлсіз бе, желілік нәтиже бұзылған ба? Ол лептин, HOMA-IR немесе CRP арқылы диагноз қоймайды. Бұл маркерлер ARC жергілікті қабынуын өлшемейді және сарысудағы лептинді 10–12 нг/мл-ден төмен түсіру мақсатын анықтамайды. Семіздік пен қатарлас бұзылыстарды бағалау клиникалық контексті қажет етеді; бастапқы нутрицевтикалық алгоритмнің расталған мәртебесі жоқ.
Лептинге төзімділік жеткілікті энергия қорына қарамастан әлсіз нейрондық жауапты түсіндіретін бірнеше механизмді біріктіреді. Модельдің құндылығы — рецептор сигналын, глия ортасын, жеткізілу мен меланокортиндік желіні байланыстыруы. Негізгі шегі — нақты адамға қолдану: клиникалық зерттеулер әсерді, қауіпсіздікті және тиісті популяцияны анықтағанға дейін тартымды нысаналар зерттеу нысаналары болып қалады.
Жиі қойылатын сұрақтар
Бір қан талдауы лептинге төзімділікті анықтай ма?
Жоқ. Сарысудағы лептин май массасына және басқа факторларға байланысты, бірақ ARC-ге жеткізілу мен жасушаішілік жауапты тікелей өлшемейді. Клиникалық контекст қажет.
Неліктен AgRP кері агонист саналады?
Тиісті эксперименттік жүйеде ол MC4R базалық белсенділігін төмендетеді. Бұл бастапқы деңгейден төмендеу, cAMP концентрациясының теріс болуы емес.
Лептин семіздігі бар барлық адамға көмектесе ме?
Туа біткен тапшылықты толықтыру кең таралған семіздіктен бөлек. Доза сынағында жауаптар әртүрлі болды және әмбебап режим бекітілмеді.
DHA мен куркумин дәлелденген ем бе?
Олардың мембраналық және қабыну механизмдері қызықты, бірақ адамның гипоталамустық төзімділігін жоюды немесе әмбебап дозаны дәлелдемейді.
Салмақ тастағаннан кейін төмен лептин салмақтың қайтуын міндетті ете ме?
Жоқ. Ол ашығу мен энергия шығынының бейімделуіне қатысуы мүмкін, бірақ орта, қолдау, мінез-құлық және ем де маңызды. Лептиндік шұңқыр бірыңғай клиникалық синдром емес.