
Нейроқабыну және кинуренин жолы: микроглия, KYNA және QUIN
Иммундық сигналдар триптофанды кинуренин жолына қалай бағыттайтынын, астроцит пен микроглия тармақтарының айырмасын және биохимиядан клиникалық қорытынды жасау шегін түсіндіреміз.
Иммундық сигналдар триптофанды кинуренин жолына қалай бағыттайтынын, астроцит пен микроглия тармақтарының айырмасын және биохимиядан клиникалық қорытынды жасау шегін түсіндіреміз.
Депрессияны серотониннің бір ғана тапшылығымен түсіндіруге болмайды, бірақ қабынуды оның жалғыз себебі деп жариялау да қате болар еді. Депрессиялық белгілері бар адамдардың бір бөлігінде иммундық белсенділену байқалады, ал эксперименттік қабыну сигналдары триптофан метаболизмі мен глия жасушаларының белсенділігін өзгертеді. Кинуренин жолы осы үдерістер түйісетін орын болғандықтан қызықты: ол шеткі тіндерде басталып, мида жалғасады және нейротрансмиссияға әртүрлі әсер ететін қосылыстар түзеді. Алайда жасушалық сызбадағы нанымды механизм диагностикалық тестпен немесе нақты адамға арналған дайын ем жоспарының баламасы емес.
Триптофан — тағамнан алынатын алмастырылмайтын аминқышқыл. Қолжетімді субстраттың аз бөлігі серотонин тармағына түседі: триптофан-гидроксилаза TPH1 негізінен шеткі тіндерде, ал TPH2 серотонинергиялық нейрондарда жұмыс істейді; одан кейін ароматты аминқышқыл декарбоксилазасы 5-гидрокситриптофанды (5-HTP) серотонинге айналдырады. Эпифизде AANAT пен ASMT серотонинді мелатонинге айналдырады. Триптофан катаболизмінің едәуір бөлігі иммундық қызметті қолдайтын әрі NAD⁺ синтезіне үлес қосатын кинуренин жолымен байланысты. Әр жолға бағытталатын үлес тінге, тағамға және ағзаның күйіне тәуелді; сондықтан «95% пен 5%» ережесін жеке пациенттің миына механикалық түрде қолдануға болмайды.
Кинуренин тармағындағы алғашқы қадам индол сақинасын ашады: L-триптофан + O₂ → N-формил-L-кинуренин. Гемі бар TDO немесе IDO1 реакцияны катализдейді, содан кейін формамидаза L-кинуренин түзеді. TDO әсіресе бауырда маңызды және басқа факторлармен қатар глюкокортикоидтар мен субстраттың қолжетімділігі арқылы реттеледі. IDO1 көптеген жасуша түрінде иммундық сигналдарға жауап ретінде белсендіріледі; IDO2 — каталитикалық белсенділігі өзгеше бөлек фермент, оны IDO1-дің жай көшірмесі деп қарастыруға болмайды. Демек, кинуренин/триптофан қатынасының өсуі метаболизмнің өзгергенін көрсетуі мүмкін, бірақ оның өзі қай фермент себеп болғанын анықтамайды.
| Бақылау нүктесі | Негізгі контекст | Түсіндіру үшін маңыздысы |
|---|---|---|
| TDO | Негізінен бауырда; субстрат пен глюкокортикоидтар реттейді | Шеткі қандағы кинуренин әрдайым IDO1-дің қабынулық индукциясын білдірмейді. |
| IDO1 | Цитокиндік жауап кезінде иммундық жасушаларда және басқа тіндерде | IFN-γ — күшті индуктор; цитокиндердің комбинациясы жауапты өзгертеді. |
| IDO2 | Иммундық реттелудің бөлек ферменті | Оның жалпы жол ағынына қосатын үлесі тін мен жағдайға тәуелді; бір тест оны ажырата алмайды. |
Интерферон-γ IFNGR рецепторы арқылы JAK1/JAK2-ні белсендіреді, бұл STAT1 фосфорлануына және IRF1 түзілуіне әкеледі; осы факторлар IDO1 транскрипциясын күшейтеді. NF-κB және басқа қабыну сигналдары интерферон жауабын өзгерте алады. Бұл каскад иммундық белсенділік метаболизм ағынын қалай қайта бағыттайтынын түсіндіреді, бірақ «триптофанның сарқылуы» деген сөз қабынуы бар әр адамда нейрондардағы серотонин міндетті түрде клиникалық мәні бар деңгейге дейін төмендейді деген жалған әсер тудырмауы керек. Антидепрессанттар да бір тасымалдағышты жай ғана тежеуден күрделірек әсер етеді, ал триптофанның бір реттік өлшемі SSRI-ға жауапты болжауға жеткіліксіз.
TDO TDO2 генімен, ал IDO1 мен IDO2 бөлек IDO1 және IDO2 гендерімен кодталады. Үш фермент те триптофанның диоксигенациясын катализдейді, бірақ таралуы, субстратқа туыстығы және реттелуі әртүрлі; сондықтан химиялық тұрғыдан бірдей алғашқы өнім негізгі үлесті қай тін қосқанын көрсетпейді. Бауырдағы TDO жүйелік триптофан метаболизмін сақтауға көмектеседі және глюкокортикоид сигналдарына жауап береді. IDO1 иммундық реттелу үшін, соның ішінде қабынған микрортада триптофан қолжетімділігін шектеу және толеранттылық қалыптастыру үшін маңызды. IDO2 қасиеттері оны иммундық жасушаларда екі ген де анықталғанның өзінде IDO1-мен бірдей каталитикалық рөлге автоматты түрде телуге мүмкіндік бермейді.
Алғашқы өнім N-формил-L-кинуренин формамидаза арқылы гидролизденіп, L-кинуренинге айналады. Бұл — KAT-тәуелді трансаминация мен KMO-тәуелді гидроксилдену тармақталатын ортақ түйін. Серотонин және кинуренин жолдарын жалпы мөлшері өзгермейтін, өзара қатынасатын екі ыдыс ретінде елестетуге болмайды: жасуша ішіндегі триптофан қолжетімділігі, тасымалдағыштардың белсенділігі, ақуыз синтезінің жылдамдығы және жергілікті ферменттер ағынды бір-бірінен тәуелсіз өзгерте алады. Қанда өлшенетін Kyn/Trp қатынасы көптеген үдерістің жиынтық нәтижесі; ол бір нейрон ішіндегі TPH2 мен IDO1 бәсекесінің тікелей өлшемі емес.
IFN-γ рецепторлық кешенге байланысқанда IFNGR1/IFNGR2 JAK1/JAK2-ні белсендіреді. Фосфорланған STAT1 димер түзіп, ядроға өтеді де GAS элементтеріне байланысады; ол индукциялаған IRF1 IDO1 реттеуші аймағындағы интерферонмен ынталанатын жауап элементтері (ISRE) арқылы әсер етеді. TNF-α және IL-1β сигналдары IKK, IκB ыдырауы және NF-κB босап шығуы арқылы осы жауаптың күшін өзгерте алады; стресс белсендіретін MAP-киназалар да әртүрлі жасушаларда қатысады. Бұл — транскрипциялық кооперацияның мысалы, әр тінде тұрақты синергия бар екенінің дәлелі емес. IL-6 да қабыну күйінің маркері әрі медиаторы, алайда оның IDO1 экспрессиясына нақты үлесі модельге тәуелді.
Кинуренин мидан тыс жерде де түзіледі. Триптофан мен кинуренин гематоэнцефалдық бөгеттен LAT1 ірі бейтарап аминқышқыл тасымалдағышы арқылы, 4F2hc-пен кешенде өте алады; басқа аминқышқылдар да тасымал үшін бәсекелеседі. 3-гидроксикинуренин де орталық жүйке жүйесіне жете алады. Керісінше, кинурен қышқылы (KYNA) мен хинолин қышқылы (QUIN) бүтін бөгеттен шектеулі мөлшерде ғана өтеді, сондықтан олардың қандағы концентрациясы мидағы микрорта жағдайын тікелей көрсетпейді. Ауру кезінде бөгеттің өткізгіштігі мен шеткі жасушалардың үлесі өзгеруі мүмкін; «бәрі тек мида синтезделеді» деген кесімді тұжырым да дәл емес.
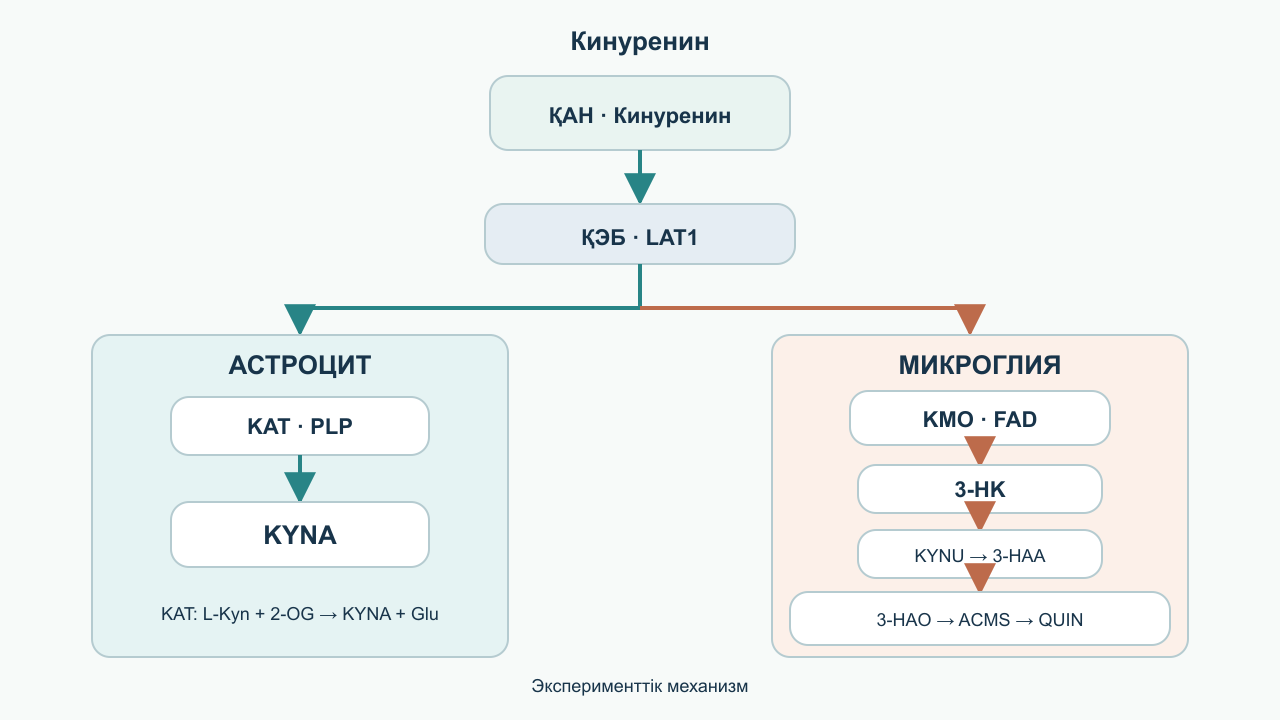
Ми тініне енген кинурениннің тағдыры алдын ала біржақты анықталмаған. Астроциттер кинуренин-аминотрансферазалар (KAT), әсіресе KAT II арқылы KYNA синтезімен көбірек байланысты. Бұл трансаминацияға пиридоксальфосфат (PLP, B₆ дәруменінің белсенді түрі) қажет: L-кинуренин + 2-оксоглутарат → кинурен қышқылы + L-глутамат. Микроглия мен инфильтрацияланған макрофагтарда KMO тармағы айқынырақ; ол 3-гидроксикинуренинге (3-HK), одан кейін кинурениназа (KYNU) және 3-гидроксиантранилат-3,4-диоксигеназа (3-HAO) арқылы ACMS аралық өніміне апарады. Бұл аралық өнім өздігінен циклденіп QUIN түзе алады; ACMSD катализдейтін балама декарбоксилдеу реакциясы ағынның бір бөлігін осы жолдан бұрады. Нақты жасушалар метаболиттерді өзара алмастырады, сондықтан «астроцит–KYNA, микроглия–QUIN» айырмасы басым жолдардың пайдалы картасы болғанымен, басқа реакцияларға қатаң тыйым салмайды.
Хинолин қышқылы жай ғана қалдық емес. QPRT ферменті оны NAD⁺ синтезіне арналған ізашарға айналдырады; мәселе — түзілу, ыдыратылу және жергілікті концентрация арасындағы теңгерімде. Сол сияқты KYNA-ны әр деңгейде автоматты түрде «пайдалы» деуге болмайды: NMDA рецепторларын антагонистік тежеуі шамадан тыс қозуды шектеуі мүмкін, алайда берілісті шамадан тыс басу когнитивтік қызметке кедергі келтіреді. Модельдік жүйелерде KYNA NMDA рецепторының ко-агонистік орнындағы глицинмен бәсекелесіп, глутамат деңгейі бірдей болғанда арнаның ашылу ықтималдығын азайтады. α7 никотиндік ацетилхолин рецепторымен және GPR35-пен өзара әсерлері де сипатталған. Бұл бақылаулар концентрацияға, жасушалық жүйеге және әдіске тәуелді; олар «NMDA бәрінде тежеледі» дегенді де, жад міндетті түрде жақсарады дегенді де дәлелдемейді. KYNA шамадан тыс көбейсе, оқу мен жұмыс жадын қолдайтын қалыпты қоздырғыш берілісті әлсіретіп, кері әсер етуі мүмкін. Сондықтан KYNA/QUIN қатынасының биологиялық мағынасы «KYNA неғұрлым көп болса, соғұрлым жақсы» деген ұранға емес, рецепторлар мен жасушалардың контекстегі белсенділігіне байланысты.
KAT I–IV — бір «нейропротекторлық фермент» емес, аминотрансферазалар тобы. Адам миында ең жақсы зерттелген KAT II AADAT генімен байланысты, бірақ изоформалардың үлесі жасуша мен жағдайға қарай өзгереді. PLP L-кинурениннен амин тобын уақытша қабылдайды; көміртек қаңқасы кейін циклденіп KYNA түзеді, ал амин тобы 2-оксоглутаратқа беріліп глутамат түзіледі. Демек, L-Kyn + 2-оксоглутарат → KYNA + L-глутамат теңдеуі бір қадамдық тікелей айналуды емес, жиынтық реакцияны сипаттайды. Бұл реакцияда түзілетін глутаматты синапстық саңылауға патологиялық глутамат бөлінуімен автоматты түрде теңестіруге болмайды.
Екінші тармақта KMO митохондрияның сыртқы мембранасында орналасады және кинуренинді 3-HK-ға дейін гидроксилдеу үшін FAD, NADPH пен оттегіні пайдаланады. Одан соң PLP-тәуелді KYNU бүйір тізбекті үзіп 3-гидроксиантранилат түзеді; құрамында темірі бар 3-HAO ароматты сақинаны ашып, тұрақсыз ACMS түзеді. ACMS ферментсіз циклденсе, QUIN пайда болады. ACMSD оны декарбоксилдегенде балама аралық өнім түзіледі, одан басқа метаболиттер, соның ішінде пиколин қышқылы пайда болуы мүмкін. Ақырында QPRT QUIN-ге фосфорибозил қалдығын жалғап, оның көміртегін NAD⁺ синтезі жолына қосады. Бұл реакциялар — өзара бәсекелес жылдамдықтар желісі: бір метаболиттің концентрациясы барлық қадамдағы ағынды анықтамайды.
3-гидроксикинуренин тотығу-тотықсыздану реакцияларына қатысып, қолайлы жағдайларда супероксид, пероксид және өзге реактивті оттегі түрлерін түзе алады. Бірақ 3-HK «анықтамасы бойынша уытты» емес: әсері концентрацияға, қатар жүретін антиоксиданттық жүйелерге және жасуша түріне байланысты. Дәрумендер туралы айтқанда PLP KAT пен KYNU-ға, ал FAD KMO-ға қажет екенін ескерген жөн; осы сызбаның өзі B₆ немесе B₂ қабылдау жол ағынын қай бағытқа өзгертетінін болжай алмайды.
KMO — митохондрияның сыртқы мембранасындағы FAD-тәуелді фермент: L-кинуренин + NADPH + H⁺ + O₂ → 3-HK + NADP⁺ + H₂O. Модельдік жүйелерде 3-HK реактивті оттегі түрлерінің түзілуіне ықпал етуі мүмкін. KYNU PLP көмегімен 3-HK-ны 3-гидроксиантранил қышқылына айналдырады, ал 3-HAO сақинаны ашып ACMS түзеді. Бұл реакциялар дәрумендерді «қорғаушы B₆» және «зиянды B₂» деп қарапайым бөлу қате екенін де көрсетеді: PLP KAT пен KYNU-ға, ал FAD KMO ферментінің қалыпты жұмысына қажет. Бұл деректер жол тармақтарын «ауыстыру» үшін дәруменнің емдік дозасын ұсынбайды. ACMS — тағы бір нақты тармақталу нүктесі: фермент әсерінсіз ол циклденіп QUIN түзеді, ал ACMSD субстраттың бір бөлігін басқа бағытқа бұрады. QUIN QPRT-тәуелді NAD⁺ синтезіне түсе алады, сондықтан оның жиналуын тек түзілуімен түсіндіру жеткіліксіз; тіннің өнімді пайдалану мүмкіндігі де маңызды. Жеңілдетілген жол сызбалары кез келген қабынудан QUIN көп түзіліп, оны пайдалану шектеледі деген сөзсіз нәтижені бейнелеп жатады. Іс жүзінде тепе-теңдік орналасуға, уақытқа және бірнеше фермент белсенділігіне тәуелді.
Эксперимент жағдайында QUIN NMDA рецепторларын белсендіріп, нейрондарға Ca²⁺ ағынын көбейтуі мүмкін. Шамадан тыс қозу кезінде кальций митохондрияда артық жиналып, олардың мембраналық потенциалын бұзады және тотығу мен протеолиз реакцияларын іске қосады. Модельдерде сипатталған қосымша әсерлерге астроциттердің EAAT2/GLT-1 арқылы глутаматты сіңіруінің төмендеуі және темірге тәуелді радикалдардың түзілуі жатады. Кері байланыс ілмегі пайда болуы мүмкін: жасушадан тыс глутамат көбейеді, рецепторлар көбірек қозады, нейрондар мен глияға түсетін салмақ артады. Бірақ тәжірибелердегі концентрациялар, жасуша түрлері мен әсер ету ұзақтығы әртүрлі; QUIN-нің плазмадан табылуы синапстар өліп жатыр немесе адамда демиелинизация жүріп жатыр дегенді білдірмейді. Нейрон өсірінділерінде Ca²⁺ ағыны буферлеу мүмкіндігін ұзақ уақыттан асып кетсе, митохондрия кальцийді қабылдап, мембраналық потенциалының бір бөлігін жоғалтады және митохондриялық өткізгіштік өтпелі пора (mPTP) ашылуы мүмкін. Содан кейін реактивті оттегі түрлері түзіліп, каспаза каскадын қоса алғанда жасуша өлімі жолдары белсенуі ықтимал. Көршілес астроциттерде EAAT2 қызметі төмендесе, жасушадан тыс глутамат көбірек қалады. Темір–QUIN кешендері мембранаға түсетін тотығу стрессінің қосымша көзі ретінде қарастырылады; тәжірибелік жүйелерде олигодендроциттер мен миелиннің осалдығы сипатталған. Бұл — қолайлы әсер жағдайында болуы мүмкін жасушалық салдарлар тізбегі, бірақ сарысудағы тесттен нақты пациенттің ми зақымына апаратын дәлелденген тізбек емес.
Синапстық пластикалылық BDNF, CREB, mTOR және дендриттік тікенектердің күйіне де тәуелді. Қабыну мен глутамат жүктемесінің артуы бұл жүйелерге әсер етіп, жад, уәж және көңіл күй туралы гипотезаларға негіз болуы мүмкін. BDNF-ке тәуелді сигналдың төмендеуі, CREB пен mTOR өзгерістері, постсинапстық тығыздық ақуызы PSD-95 пен синаптофизиннің өзгеруі ұзақ жасушалық стресс дендриттік тікенектерді қалай өзгертуі мүмкін екенін сипаттайды. Мінез-құлық деңгейінде бұл каскад кейде ангедония және когнитивтік қиындықтармен байланыстырылады, бірақ бір механизм депрессияның бүкіл көрінісін түсіндірмейді. Клиникалық зерттеулердегі метаболиттер мен гиппокамп көлемі арасындағы байланыстар — ассоциациялар ғана: бұл құрылым көлеміне биологиялық және өмірлік өзге факторлар да әсер етеді. Кетаминнің жылдам әсері де QUIN бастапқы симптомдардың себебі болғанын дәлелдемейді; NMDA сигналдануы бірнеше түрлі үдеріске қатысады.
NMDA рецепторы бірнеше шарт қатар орындалғанда ғана ашылады: глутамат өз орнына байланысады, глицин немесе D-серин ко-агонист орнын иеленеді, ал деполяризация кернеуге тәуелді Mg²⁺ бөгетін арна сағасынан босатады. Модельдік жүйелерде KYNA ко-агонист орнының толуын қиындатады; QUIN кейбір NMDA рецепторларында глутамат орнына әсер ете алады. Демек, «теңгерім» сөзі екі заттың қарапайым арифметикалық қатынасын емес, функционалдық желіні білдіреді. GluN2A және GluN2B суббірліктерінің нақты үлесі ми аймағы мен жасушалық контекстке қарай өзгереді; тәжірибеде қолданылған QUIN-нің жоғары концентрациялары тірі мидағы әр рецептордың картасы ретінде қарастырылмауы керек.
Белсенділену ұзаққа созылса, Ca²⁺ цитоскелет пен постсинапстық аппаратты қайта құратын ферменттерді іске қосады; митохондриялар да келіп жатқан кальцийді буферлеуге тырысады. Бейімделу мүмкіндігі асқанда CREB-ке тәуелді транскрипция, BDNF/TrkB сигналдануы және тікенектер мен везикулярлық аппаратты қолдайтын ақуыздар өзгереді. EAAT2 арқылы астроциттердің глутаматты тазартуы одан әрі төмендесе, жасушадан тыс сигнал күшейеді. Бастапқы модельде осы сатылар апоптозға баратын түзу сызықпен жалғанған, бірақ тірі адамда кері байланыс, қалпына келу және желі өзгерісінің өзге себептері бар. Сондықтан жасушалық эксайтоуыттылық пен клиникалық депрессия дәлелдің әр деңгейіне жатады.
Депрессия зерттеулерінде кейбір топтарда қабыну цитокиндері мен кинуренин метаболиттерінің өзгерістері анықталғанымен, нәтижелер біркелкі емес. Steiner жүргізген өлімнен кейінгі зерттеу ауыр депрессия кезінде белдеулік қыртыстың белгілі бір аймағында QUIN-оң микроглияның көбірек болғанын көрсетті. Savitz және әріптестері емге төзімді депрессияда KYNA/QUIN қатынасының төмен болғанын хабарлады, ал жұлын сұйықтығын зерттеген жұмыстар QUIN мен суицидтік мінез-құлық арасындағы байланысты қарастырды. Бұл бақылаулардың ешқайсысы QUIN мөлшерін немесе метаболиттер қатынасын жеке диагнозға, суицид қаупін болжауға немесе стандартты көмектен бас тартуға негіз етпейді. Ангедония марапат жүйелері және дофаминдік сигналданумен байланысты, бірақ қабыну метаболиттерінің болуы нақты адамда QUIN сол жүйеге кедергі жасады дегенді дәлелдемейді. Суицидтік мінез-құлық та көптеген факторға тәуелді: жұлын сұйықтығына жүргізілген зерттеулер жеке адамның ниеті не қаупіне арналған тест бола алмайды.
Емге төзімді депрессия кезіндегі инфликсимаб клиникалық сынағы пациенттер арасындағы әркелкіліктің маңызды мысалы: жалпы іріктемеде сенімді пайда көрсетпеді, ал бастапқы қабыну профилі ықтимал жауап модификаторы ретінде талқыланды. Омега-3 зерттеулерінде кейбір топтар мен режимдерде депрессиялық белгілердің өзгергені байқалды, бірақ мета-талдаудағы сигнал EPA нақты пациентте IDO1-ді «сөндіргені» дәлелденді деген емес. Қабынуға қарсы ем және кинуренин метаболизмін өзгерту психотерапия мен стандартты фармакотерапиямен қатар зерттеу нысаны болып қала береді.
Kyn/Trp қатынасы әдетте бір үлгідегі кинуренин мен триптофан концентрацияларынан есептеледі. Ол кейде кинуренин жолы белсенділігінің жанама көрсеткіші ретінде қолданылады, бірақ оған TDO, тамақтану, бүйрек қызметі, өлшеу әдісі және мидан тыс қабыну әсер етеді. KYNA/QUIN және QUIN/KYNA кері қатынастарын шатастырмау керек: бір ортада бірдей аналиттер өлшенсе, бірінің артуы екіншісінің кемуін білдіреді. Плазма мен жұлын сұйықтығын бір формулаға араластыруға болмайды, ал зерттеу шектерін жалпы клиникалық межелер ретінде ұсынбаған жөн.
| Көрсеткіш | Нені көрсетуі мүмкін | Нені дәлелдемейді |
|---|---|---|
| Бір ортадағы триптофан, кинуренин және Kyn/Trp | Субстрат қолжетімділігін және сынама алынған сәттегі жолдағы жалпы ығысуды | Жеке IDO1 белсенділігін немесе синапстағы серотонинді. |
| KYNA, QUIN және олардың қатынасы | Метаболиттердің таралуын зерттеу тұрғысынан сипаттауды | Тек сарысу негізінде жеке пациенттегі нейроуыттылықты. |
| hs-CRP, IL-6 | Жүйелік қабыну контекстін | Депрессия себебін немесе мидағы цитокин концентрациясын. |
| NfL | Тиісті көрсетілім болғанда нейрондық құрылымдардың зақымдануын | QUIN туғызған нақты зақымды; көрсеткіш жас пен ауруға тәуелді. |
Бұл талдаулар зерттеуде қолданылуы немесе басқа клиникалық көрсетілімдермен тағайындалуы мүмкін, бірақ депрессияға арналған стандартталған диагностикалық «кинуренин алгоритмі» жоқ. Дәрігер симптомдарды, ұзақтығын, өзіне зиян келтіру қаупін, қатар жүретін жағдайлар мен дәрілерді бағалайды. Суицид туралы ойлар биомаркерлерді өз бетінше түсіндіруді емес, кәсіби көмекті шұғыл қажет етеді.
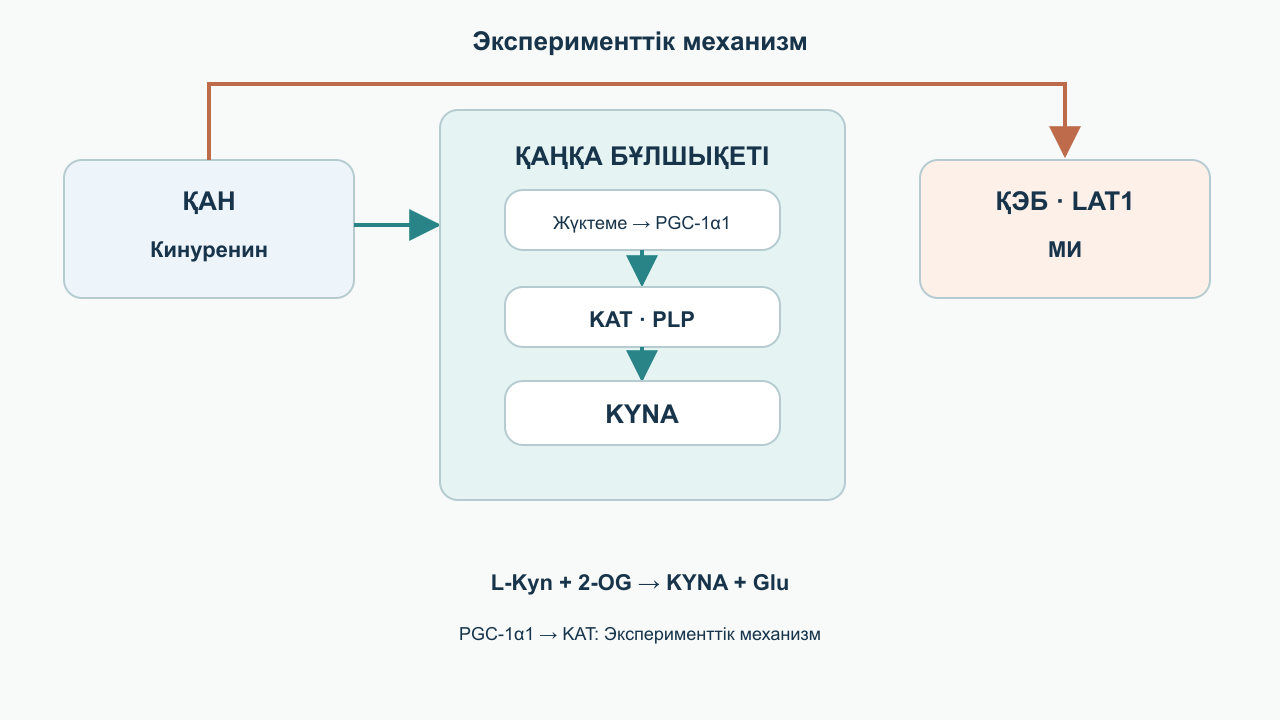
Agudelo және әріптестері тышқандарда бұлшықеттегі PGC-1α1 экспрессиясы KAT мөлшерін арттырып, қан айналымындағы кинурениннің бір бөлігін KYNA-ға айналдыратынын және стресске төзімділікпен байланысатынын көрсетті. Бұл — бұлшықет пен ми байланысының әсерлі мысалы: шеткі айналу орталық тармақтарға қолжетімді субстратты азайтуы мүмкін. Ұсынылған модельде бұлшықет жиырылуы AMPK және CaMK-пен байланысты энергетикалық және кальций сигналдарын іске қосып, одан кейін коактиватор PGC-1α1 экспрессиясын арттырады. Бұлшықет гендерінің реттелуі KAT белсенділігін арттырады: қандағы қолжетімді кинурениннің бір бөлігі KYNA-ға айналады, ал ол бүтін гематоэнцефалдық бөгеттен әлдеқайда нашар өтеді. Осылайша орталық тармақтарға түсетін ықтимал субстрат көздерінің бірі азаяды. Бірақ бұл тәжірибе адамдардағы депрессияны емдеуге арналған нақты жаттығу «аймағын», жиілігін немесе ұзақтығын белгілемейді. Дене белсенділігі жалпы клиникалық себептерге байланысты кешенді көмек жоспарына енуі мүмкін, бірақ оның әсерін тек кинуренинмен түсіндіруге болмайды.
Зерттеуге арналған Ro 61-8048 және JM6 қоса алғанда KMO тежегіштері клиникаға дейінгі модельдерде метаболиттер мен нәтижелерді өзгертті. Олар депрессияны өз бетінше емдеуге дайын дәрілер емес. Куркумин, ресвератрол, EGCG, сульфорафан және N-ацетилцистеин зертханалық жүйелерде әртүрлі қабынуға қарсы немесе антиоксиданттық әсер көрсетті; бұл заттардың кез келген түрін қабылдау адам миындағы QUIN мөлшерін азайтатынын немесе психиатриялық көмекті алмастыратынын білдірмейді. Ұсынылған нысаналар әртүрлі: EPA үшін қабынуды басуға маманданған медиаторлар мен цитокиндік сигналдар; куркумин мен EGCG үшін эксперименттік жүйелердегі NF-κB немесе JAK/STAT; ресвератрол үшін SIRT1 пен қабыну жауабы; ал сульфорафан үшін Nrf2-ке тәуелді антиоксидант ферменттері талқыланады. Осы сигнал жолдарының ешқайсысы жеке заттың адамда дәлелденген IDO1 тежегіші екенін білдірмейді. Өнім құрамы, биожетімділігі, қолдану ұзақтығы және тінге жетуі де нәтижені клиникаға көшіруді шектейді. N-ацетилцистеин үшін глутатион ізашарының жеткізілуі мен глутамат метаболизміне әсері талқыланады; цистин–глутамат антипортері мен EAAT2 жолы бұл қосылыс QUIN-нен синапстарды клиникалық тұрғыда қорғайды дегенді дәлелдемейді. Концентрленген экстрактілердің шектеулері мен өзара әсерлері бар; атап айтқанда, қауіпсіз доза жасуша тәжірибесінен анықталмайды.
NMDA арнасының Mg²⁺ иондарымен физиологиялық бөгелуі ауыз арқылы қабылданатын магний депрессия кезінде рецепторды QUIN-нен «қорғайды» дегенді білдірмейді. PLP KAT пен KYNU-ға, ал FAD KMO-ға қатысады, бірақ осы ферменттерді дәруменнің жоғары дозаларымен емдік мақсатта ауыстыру дәлелденбеген. Қоректік заттардың тапшылығын әдеттегі клиникалық бағалаудың бір бөлігі ретінде қарастыруға болады, алайда кинуренин жолын нақты түзетуге уәде беруге болмайды.
KMO-ны тікелей тежеу — 3-HK түзілуінен жоғары тұрған ферментке бағытталған қисынды зерттеу мақсаты. Тежегіш тәжірибелерінде шеткі және орталық метаболиттер өзгереді, бірақ препараттың бөгеттен өтуін, Kyn тасымалының бағытын және KAT белсенділігінің өтемдік өзгеруін бөлек талдау керек. Zwilling зерттеуі нейродегенерацияның эксперименттік модельдерінде қорғаныш әсерлерін көрсетті; оны емге төзімді депрессиядағы клиникалық сынақ деп атауға болмайды. Тіндегі QUIN азайса да, адамдарда қауіпсіздік пен клиникалық мәні бар симптомдарға пайда дәлелденгенше ол аралық биомаркер болып қалады.
Омега-3 үшін клиникалық сұрақ механизмдік сұрақтан бөлек. Мета-талдаулар әртүрлі өнімдер мен популяциялардағы депрессиялық белгілерді зерттейді; олар әр қатысушыда resolvin-дер міндетті түрде IDO1-ді басатынын өлшемейді. Өсімдік полифенолдарына қатысты белгісіздік тізбегі тағы басқа: бастапқы молекула, оның метаболиттері, қандағы концентрациясы және миға жетуі едәуір ерекшеленуі мүмкін. EPA, куркумин, ресвератрол, EGCG, сульфорафан, NAC, магний және дәрумендерді біріктіретін «интегративті» қоспа кинуренинге арналған біртұтас хаттама ретінде сыналмаған. Жасушалық механизмдерді қосу мұндай қоспаның тиімді не қауіпсіз екеніне дәлел жасамайды.
Кинуренин жолы иммундық жауапты, триптофан метаболизмін және глутаматтық берілісті байланыстырады. Ферменттік реакциялар мен метаболиттердің кейбір жасушалық әсерлері анағұрлым сенімді сипатталған; адамдардағы депрессиямен байланысы күрделірек және қосалқы топқа, үлгіге әрі зерттеу әдісіне тәуелді. Сондықтан Kyn/Trp немесе QUIN/KYNA қатынасын жеке «нейроқабыну индексі» ретінде қолдануға болмайды, ал механизм сызбасын қоспа тағайындау ретінде қабылдамау керек.
Депрессиялық белгілері бар адам үшін сирек метаболиттер панелін өз бетінше таңдағаннан гөрі жан-жақты клиникалық бағалау мен пайдасы дәлелденген ем маңызды. Кинуренин жүйесі бойынша зерттеулер болашақта пациенттерді іріктеуді жақсартып, жаңа ем нысаналарын ашуы мүмкін. Әзірге оның практикалық құндылығы иммундық, метаболизмдік және нейрондық үдерістерді бір-бірінен бөлек қарастыруға болмайтынын дәлірек түсіндіруде.
Бұл — ферменттік реакциялар, глия, клиникаға дейінгі араласулар және клиникалық бақылаулар туралы алдын ала жиналған 18 жарияланымға сүйенген кинуренин жолының нарративтік шолуы. Редакциялық жұмыс 2026 жылғы 4 қазанда аяқталды. Алдын ала белгіленген хаттама бойынша жүйелі іздеу, мета-талдау және әр зерттеудің ығысу қаупін ресми бағалау жүргізілген жоқ; дереккөздер тізімі толық қамтылған деп саналмайды.
Жасушалық және жануарлық механизмдер адамдарда жүргізілген бақылаулардан бөлек қарастырылады. Қабыну маркері мен симптомдардың байланысы себеп-салдарды немесе араласудың тиімділігін дәлелдемейді. Түсіндіру кезінде жасушалық компартмент, өлшеу тәсілі, популяция және нәтижелік көрсеткіш маңызды. Бір биохимиялық сызбадан расталмаған диагностикалық шектер мен емдік уәделер шығарылмайды; зерттеудің осы жинаққа кірмеуі де мәселе бойынша дерек мүлде жоқ дегенді білдірмейді.
Жоқ. Бұл қатынас зерттелген үлгідегі жалпы метаболизм өзгерісін көрсетеді; оған басқа ферменттер мен факторлар да ықпал етеді, ал қан ми тінін тікелей өлшемейді.
Жоқ. QUIN NAD⁺ синтезіне қатысады, ал KYNA шамадан тыс көбейсе қалыпты нейротрансмиссияны бұзуы мүмкін. Жергілікті теңгерім мен контекст маңызды; оларды сарысудағы бір саннан білу мүмкін емес.
Барлығына ортақ шектері бар стандартталған клиникалық алгоритм жоқ. Көмек туралы шешім симптомдарды, қауіпті және қатар жүретін ауруларды бағалауға сүйенеді.
Жоқ. Механизм негізінен эксперименттік модельде көрсетілген; адамға арналған дене белсенділігінің қарқыны мен көлемі әдеттегі клиникалық көрсетілімдерге сай таңдалады.
Жасушалық және жануарлық деректер қоспаларды өз бетінше қабылдау адам миындағы осы тармақтарды өзгертетінін немесе депрессия емін алмастыратынын дәлелдемейді.