Kinurenin yo‘li va neyroyallig‘lanish: mikroglia, KYNA, QUIN — NutriFit
Neyroyallig‘lanish va kinurenin yo‘li: mikroglia, KYNA va QUIN
Immun signallari triptofanni kinurenin yo‘liga qanday yo‘naltirishini, astrosit va mikroglia tarmoqlari nimasi bilan farq qilishini hamda biokimyoviy dalillardan klinik xulosa chiqarish chegaralarini tushuntiramiz.
Depressiyani serotoninning yagona yetishmovchiligi bilan izohlab bo‘lmaydi, ammo yallig‘lanishni uning yagona sababi deb e’lon qilish ham xato bo‘ladi. Depressiv alomatlari bor ayrim odamlarda immun faollashuv belgilari aniqlanadi, tajribaviy yallig‘lanish signallari esa triptofan almashinuvi va glial hujayralar faoliyatini o‘zgartiradi. Kinurenin yo‘li aynan shu jarayonlar uchrashadigan nuqta bo‘lgani uchun qiziqarli: u periferik to‘qimalarda boshlanadi, miyada davom etadi va nerv uzatilishiga turlicha ta’sir qiluvchi moddalarni hosil qiladi. Biroq hujayra sxemasidagi ishonarli mexanizm tashxis testi yoki muayyan odam uchun tayyor davolash rejasi bilan teng emas.
Triptofanning ikki taqdiri
Triptofan — ovqatdan olinadigan almashmaydigan aminokislota. Mavjud substratning oz qismi serotonin tarmog‘iga yo‘naladi: triptofan gidroksilaza TPH1 asosan periferiyada, TPH2 esa serotonergik neyronlarda ishlaydi; so‘ng aromatik aminokislota dekarboksilazasi 5-gidroksitriptofan (5-HTP)ni serotoninga aylantiradi. Epifizda AANAT va ASMT serotoninni melatoninga aylantiradi. Triptofan katabolizmining katta qismi immun vazifalarni qo‘llab-quvvatlaydigan va NAD⁺ sinteziga hissa qo‘shadigan kinurenin yo‘li bilan bog‘liq. Har bir yo‘lga yo‘naladigan ulush to‘qima, ovqatlanish va organizm holatiga bog‘liq; shu bois “95% ga qarshi 5%” qoidasini alohida bemorning miyasiga mexanik tarzda tatbiq etib bo‘lmaydi.
Kinurenin tarmog‘idagi ilk qadam indol halqasini ochadi: L-triptofan + O₂ → N-formil-L-kinurenin. Gem saqlovchi TDO yoki IDO1 reaksiyani katalizlaydi, undan keyin formamidaza L-kinurenin hosil qiladi. TDO ayniqsa jigarda muhim va boshqa omillar qatori glyukokortikoidlar hamda substrat mavjudligi bilan boshqariladi. IDO1 ko‘plab hujayra turlarida immun signallar ta’sirida faollashadi; IDO2 katalitik faolligi boshqacha bo‘lgan alohida ferment bo‘lib, uni IDO1ning oddiy nusxasi deb bo‘lmaydi. Demak, kinurenin/triptofan nisbatining ortishi almashinuv siljishini ko‘rsatishi mumkin, lekin uning o‘zi bunga qaysi ferment sabab bo‘lganini aniqlamaydi.
Nazorat nuqtasi
Asosiy kontekst
Talqin uchun muhim jihat
TDO
Asosan jigar; substrat va glyukokortikoidlar bilan boshqariladi
Periferik kinurenin har doim IDO1ning yallig‘lanish bilan induksiyasini anglatmaydi.
IDO1
Sitokin javobi vaqtida immun hujayralari va boshqa to‘qimalar
IFN-γ kuchli induktor; sitokinlar birikmasi javobni o‘zgartiradi.
IDO2
Alohida immun boshqaruvi
Umumiy yo‘l oqimiga hissasi to‘qima va sharoitga bog‘liq; bitta tahlil uni ajrata olmaydi.
Interferon-γ IFNGR retseptori orqali JAK1/JAK2ni faollashtiradi, natijada STAT1 fosforlanadi va IRF1 hosil bo‘ladi; bu omillar IDO1 transkripsiyasini kuchaytiradi. NF-κB va boshqa yallig‘lanish signallari interferonga javobni o‘zgartirishi mumkin. Ushbu kaskad immun faollik metabolik oqimni qanday yo‘naltirishini tushuntiradi, ammo “triptofan tanqisligi” iborasi yallig‘lanishi bor har bir odamda neyronlardagi serotonin klinik jihatdan muhim darajagacha albatta kamayadi degan noto‘g‘ri tasavvur uyg‘otmasligi kerak. Antidepressantlar ham bitta tashuvchini oddiy bloklashdan murakkabroq ta’sir qiladi, triptofanning bir martalik o‘lchovi esa SSRIga javobni bashorat qilishga yetarli emas.
Yo‘lga kirishdagi fermentlar arxitekturasi
TDO TDO2 geni bilan, IDO1 va IDO2 esa alohida IDO1 hamda IDO2 genlari bilan kodlanadi. Uchala ferment ham triptofan dioksigenatsiyasini katalizlaydi, biroq tarqalishi, substratga moyilligi va boshqarilishi bilan farqlanadi; shu sabab kimyoviy jihatdan bir xil dastlabki mahsulot asosiy hissani qaysi to‘qima qo‘shganini ko‘rsatmaydi. Jigardagi TDO tizimli triptofan almashinuvini saqlashga yordam beradi va glyukokortikoid signaliga javob beradi. IDO1 immun boshqaruvida, jumladan yallig‘langan mikromuhitda triptofan mavjudligini cheklash va tolerantlikni shakllantirishda muhim. IDO2 xususiyatlari, hatto immun hujayralarida ikkala gen ham aniqlansa-da, unga avtomatik ravishda IDO1 bilan bir xil katalitik vazifani yuklashga imkon bermaydi.
Dastlabki mahsulot N-formil-L-kinurenin formamidaza orqali gidrolizlanib, L-kinureninga aylanadi. Bu KATga bog‘liq transaminatsiya va KMOga bog‘liq gidroksillanish ajraladigan umumiy tugundir. Serotonin va kinurenin yo‘llarini umumiy miqdori o‘zgarmaydigan, o‘zaro tutash ikki idish sifatida tasavvur qilmaslik kerak: hujayra ichidagi triptofan mavjudligi, tashuvchilar faolligi, oqsil sintezi tezligi va mahalliy fermentlar oqimni bir-biridan mustaqil o‘zgartiradi. Qonda o‘lchanadigan Kyn/Trp nisbati ko‘plab jarayonlarning yakuniy natijasi bo‘lib, bitta neyron ichidagi TPH2 va IDO1 raqobatining bevosita o‘lchovi emas.
IFN-γ retseptor kompleksiga bog‘langanda IFNGR1/IFNGR2 JAK1/JAK2ni faollashtiradi. Fosforlangan STAT1 dimer hosil qilib yadroga o‘tadi va GAS elementlariga bog‘lanadi; u induksiya qilgan IRF1 esa IDO1ning boshqaruv qismidagi interferon bilan rag‘batlantiriladigan javob elementlari (ISRE) orqali ta’sir qiladi. TNF-α va IL-1β signallari IKK, IκB parchalanishi va NF-κBning ajralib chiqishi orqali javob kuchini o‘zgartirishi mumkin; stress faollashtiradigan MAP-kinazalar ham turli hujayra turlarida qatnashadi. Bu transkripsion hamkorlik misoli, har bir to‘qimada doimiy sinergiya borligining isboti emas. IL-6 ham yallig‘lanish holatining markeri va mediatori, ammo uning IDO1ning muayyan ekspressiyasiga qo‘shadigan hissasi modelga bog‘liq.
Qon va miya o‘rtasidagi chegara
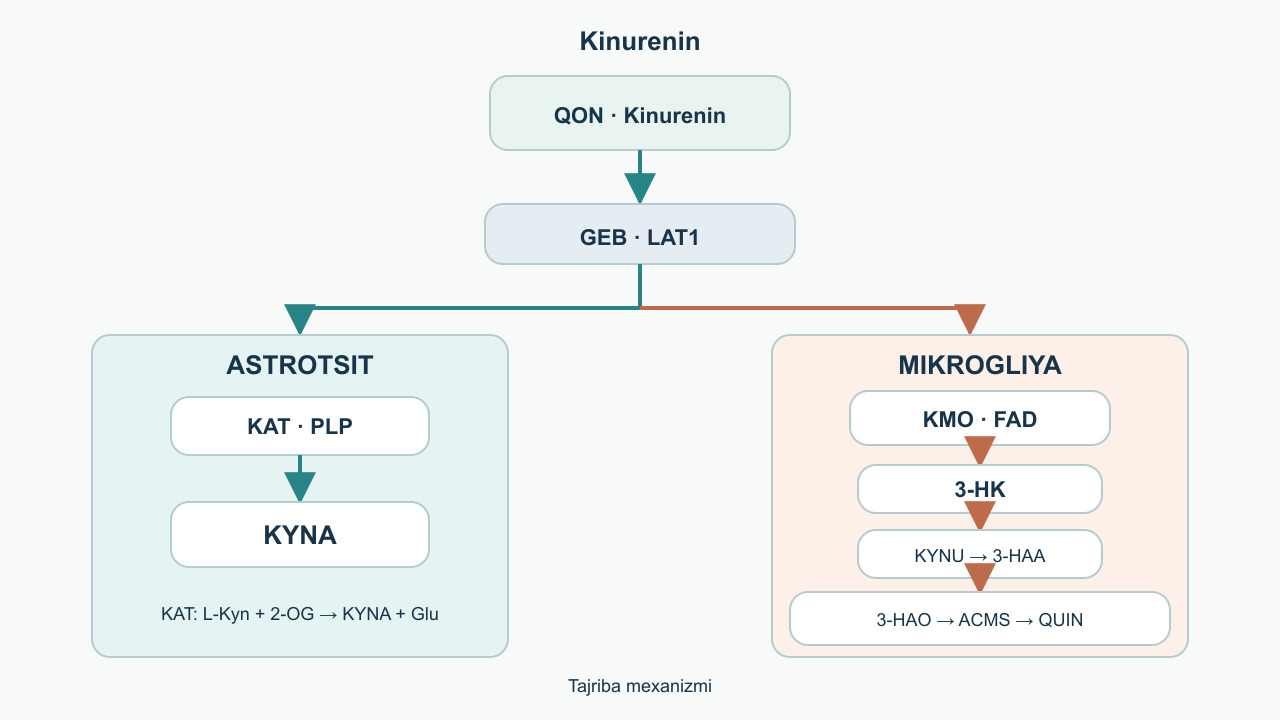
Kinurenin miyadan tashqarida ham hosil bo‘ladi. Triptofan va kinurenin qon–miya to‘sig‘idan yirik neytral aminokislotalar tashuvchisi LAT1 orqali, 4F2hc bilan kompleks holida o‘ta oladi; boshqa aminokislotalar ham tashilish uchun raqobatlashadi. 3-gidroksikinurenin ham markaziy asab tizimiga yetishi mumkin. Aksincha, kinuren kislotasi (KYNA) va xinolin kislotasi (QUIN) butun to‘siqdan cheklangan miqdordagina o‘tadi, shu bois qondagi konsentratsiyasi miya mikromuhitining bevosita tasviri emas. Kasallik paytida to‘siq o‘tkazuvchanligi va periferik hujayralar hissasi o‘zgarishi mumkin; “hammasi faqat miyada sintezlanadi” degan mutlaq fikr ham noto‘g‘ri.
Miya to‘qimasiga kirgan kinureninning taqdiri oldindan bitta yo‘nalishda belgilab qo‘yilmagan. Astrositlar kinurenin aminotransferazalar (KAT), ayniqsa KAT II orqali KYNA sintezi bilan ko‘proq bog‘liq. Bu transaminatsiya uchun piridoksal fosfat (PLP, B₆ vitaminining faol shakli) kerak: L-kinurenin + 2-oksoglutarat → kinuren kislotasi + L-glutamat. Mikroglia va kirib kelgan makrofaglarda KMO tarmog‘i ko‘proq namoyon bo‘ladi; u 3-gidroksikinurenin (3-HK)ga, so‘ng kinureninaza (KYNU) va 3-gidroksiantranilat-3,4-dioksigenaza (3-HAO) orqali ACMS oraliq mahsulotiga olib boradi. Bu oraliq modda o‘z-o‘zidan sikllanib QUIN hosil qilishi mumkin; ACMSD katalizlaydigan muqobil dekarboksillanish reaksiyasi oqimning bir qismini undan chetga buradi. Haqiqiy hujayralar metabolitlarni o‘zaro almashadi, shuning uchun “astrosit–KYNA, mikroglia–QUIN” ajratishi ustun yo‘llarning foydali xaritasi, boshqa reaksiyalarni qat’iy taqiqlash emas.
Xinolin kislotasining o‘zi shunchaki chiqindi emas. QPRT fermenti uni NAD⁺ sintezi uchun boshlang‘ich moddaga aylantiradi; muammo hosil bo‘lish, chiqarib yuborilish va mahalliy konsentratsiya o‘rtasidagi nomutanosiblikdir. Xuddi shuningdek, KYNAni har qanday darajada avtomatik ravishda “foydali” deyish mumkin emas: NMDA retseptoriga antagonistik ta’siri ortiqcha qo‘zg‘alishni cheklashi mumkin, ammo uzatishni haddan tashqari bostirish kognitiv faoliyatni buzishi ehtimol. Model tizimlarida KYNA NMDA retseptorining ko-agonist joyida glitsin bilan raqobatlashib, glutamat miqdori o‘zgarmagan sharoitda kanal ochilish ehtimolini kamaytiradi. α7 nikotinik atsetilxolin retseptorlari va GPR35 bilan o‘zaro ta’sirlar ham tasvirlangan. Bu kuzatuvlar konsentratsiya, hujayra tizimi va usulga bog‘liq; ulardan “NMDA hamma joyda bloklanadi” yoki xotira albatta yaxshilanadi degan xulosa kelib chiqmaydi. KYNA haddan ortsa, o‘rganish va ishchi xotira uchun zarur me’yoriy qo‘zg‘atuvchi uzatishni susaytirib, teskari ta’sir qilishi mumkin. Shu sabab KYNA/QUIN nisbatining biologik ma’nosi “KYNA qancha ko‘p bo‘lsa, shuncha yaxshi” shioriga emas, retseptor va hujayralarning kontekstdagi faolligiga bog‘liq.
Kompartmentlar, kofaktorlar va kimyoviy tarmoqlanish nuqtasi
KAT I–IV bitta “neyroprotektiv ferment” emas, aminotransferazalar oilasidir. Odam miyasida eng ko‘p o‘rganilgan KAT II AADAT geni bilan bog‘liq, biroq izoformalar hissasi hujayra va sharoitga qarab farq qiladi. PLP L-kinurenindan amin guruhini vaqtincha qabul qiladi; uglerod skeleti keyin sikllanib KYNA hosil qiladi, amin guruhi esa 2-oksoglutaratga ko‘chib, glutamat hosil qiladi. Demak, L-Kyn + 2-oksoglutarat → KYNA + L-glutamat tenglamasi bir bosqichli bevosita aylanishni emas, yakuniy yig‘indi reaksiyasini ifodalaydi. Bu reaksiyada hosil bo‘lgan glutamatni sinaptik tirqishga patologik glutamat ajralishi bilan avtomatik tenglashtirib bo‘lmaydi.
Boshqa tarmoqda KMO mitoxondriyaning tashqi membranasida joylashadi va kinureninni 3-HKga gidroksillash uchun FAD, NADPH hamda kisloroddan foydalanadi. Keyin PLPga bog‘liq KYNU yon zanjirni olib tashlab, 3-gidroksiantranilat hosil qiladi; temir saqlovchi 3-HAO aromatik halqani ochib, beqaror ACMS hosil qiladi. ACMS ferment ishtirokisiz sikllansa, QUIN paydo bo‘ladi. ACMSD uni dekarboksillaganda muqobil oraliq modda hosil bo‘ladi, undan boshqa metabolitlar, jumladan pikolin kislotasi, paydo bo‘lishi mumkin. Nihoyat, QPRT QUINga fosforibozil qoldig‘ini biriktirib, uning uglerodini NAD⁺ sintezi yo‘liga kiritadi. Bu reaksiyalar raqobatlashuvchi tezliklar tarmog‘ini tashkil qiladi: bitta metabolit konsentratsiyasi barcha bosqichlardagi oqimni belgilamaydi.
3-gidroksikinurenin oksidlanish-qaytarilish reaksiyalarida qatnashib, mos sharoitlarda superoksid, peroksid va boshqa reaktiv kislorod turlarini hosil qilishi mumkin. Ammo 3-HK “ta’rifiga ko‘ra zaharli” emas: ta’siri konsentratsiya, yonma-yon ishlaydigan antioksidant tizimlar va hujayra turiga bog‘liq. Vitaminlar haqida gap ketganda PLP ham KAT, ham KYNUga, FAD esa KMOga kerakligini hisobga olish zarur; bu sxemaning o‘zi B₆ yoki B₂ qabul qilish oqimni qaysi tomonga o‘zgartirishini oldindan ko‘rsatmaydi.
Kimyodan sinapsgacha
KMO — mitoxondriya tashqi membranasidagi FADga bog‘liq ferment: L-kinurenin + NADPH + H⁺ + O₂ → 3-HK + NADP⁺ + H₂O. Model tizimlarida 3-HK reaktiv kislorod turlarining hosil bo‘lishiga yordam berishi mumkin. KYNU PLP yordamida 3-HKni 3-gidroksiantranil kislotasiga aylantiradi, 3-HAO esa halqani ochib ACMS hosil qiladi. Bu reaksiyalar vitaminlarni “himoya qiluvchi B₆” va “zararli B₂”ga sodda ajratish noto‘g‘ri ekanini ham ko‘rsatadi: PLP KAT va KYNUga, FAD esa KMOning odatiy ferment vazifasiga kerak. Bu ma’lumotlar yo‘l tarmoqlarini “almashtirish” uchun vitaminning davolovchi dozasini belgilamaydi. ACMS yana bir haqiqiy tarmoqlanish nuqtasi: ferment ta’sirisiz u sikllanib QUIN hosil qiladi, ACMSD esa substratning bir qismini muqobil yo‘lga buradi. QUIN QPRTga bog‘liq NAD⁺ sinteziga kirishi mumkin, shuning uchun uning to‘planishini faqat hosil bo‘lish bilan izohlab bo‘lmaydi; to‘qimaning mahsulotni ishlatish qobiliyati ham muhim. Soddalashtirilgan yo‘l sxemalari ba’zan har qanday yallig‘lanishda QUIN ko‘p hosil bo‘lishi va uning sarflanishi cheklanishini muqarrar natija sifatida ko‘rsatadi. Amalda muvozanat joylashuv, vaqt va bir nechta ferment faolligiga bog‘liq.
Tajriba sharoitida QUIN NMDA retseptorlarini faollashtirib, neyronlarga Ca²⁺ kirishini oshirishi mumkin. Ortiqcha qo‘zg‘alishda kalsiy mitoxondriyalarda to‘planib, ularning membrana potensialini buzadi va oksidlanish hamda proteoliz reaksiyalarini ishga tushiradi. Modellarda tasvirlangan qo‘shimcha ta’sirlar orasida astrositlarning EAAT2/GLT-1 orqali glutamatni yutishi kamayishi va temirga bog‘liq radikallar hosil bo‘lishi bor. Natijada teskari aloqa halqasi yuzaga kelishi mumkin: hujayradan tashqari glutamat ko‘payadi, retseptorlar ko‘proq qo‘zg‘aladi, neyron va glialarga tushadigan yuk ortadi. Biroq tajribalardagi konsentratsiya, hujayra turi va ta’sir davomiyligi farq qiladi; plazmada QUIN topilishi sinapslar nobud bo‘layotganini yoki muayyan odamda demiyelinizatsiya borligini anglatmaydi. Neyron kulturalarida Ca²⁺ oqimi buferlash imkoniyatidan uzoq vaqt oshib ketsa, mitoxondriyalar kalsiyni yutadi, membrana potensialining bir qismini yo‘qotadi va mitoxondrial o‘tkazuvchanlik o‘tish porasi (mPTP) ochilishi mumkin. Shundan so‘ng reaktiv kislorod turlari hosil bo‘lib, kaspaza kaskadini ham o‘z ichiga olgan hujayra o‘limi yo‘llari faollashishi mumkin. Qo‘shni astrositlarda EAAT2 faoliyati kamayganda hujayradan tashqarida ko‘proq glutamat qoladi. Temir–QUIN komplekslari membranalardagi oksidlanish stressining qo‘shimcha manbai deb qaraladi; tajriba tizimlarida oligodendrositlar va miyelinning zaifligi tasvirlangan. Bu tegishli ta’sir sharoitida yuz berishi mumkin bo‘lgan hujayraviy oqibatlar zanjiri, qon zardobidagi tahlildan muayyan bemor miyasining shikastlanishigacha isbotlangan zanjir emas.
Sinaptik plastiklik BDNF, CREB, mTOR va dendritik tikanlarning holatiga ham bog‘liq. Yallig‘lanish va ortiqcha glutamat yuklamasi bu tizimlarga ta’sir qilib, xotira, motivatsiya va kayfiyat haqidagi farazlarga asos bo‘lishi mumkin. BDNFga bog‘liq signalning kamayishi, CREB va mTOR o‘zgarishlari, postsinaptik zichlik oqsili PSD-95 hamda sinaptofizin o‘zgarishlari uzoq davom etgan hujayra stressi dendritik tikanlarga qanday ta’sir qilishi mumkinligini ifodalaydi. Xulq darajasida bu kaskad ba’zan anhedoniya va kognitiv qiyinchiliklar bilan bog‘lanadi, ammo bitta mexanizm depressiyaning barcha ko‘rinishini tushuntirmaydi. Klinik tadqiqotlarda metabolitlar va gipokamp hajmi o‘rtasidagi bog‘liqlik assotsiatsiyadir: bu tuzilma hajmiga biologik hamda hayotiy boshqa omillar ham ta’sir qiladi. Ketaminning tezkor ta’siri ham dastlabki alomatlarga QUIN sabab bo‘lganini isbotlamaydi; NMDA signallanishi bir necha turli jarayonlarda qatnashadi.
Retseptordan neyron tarmog‘igacha
NMDA retseptori bir nechta shart bir vaqtda bajarilganda ochiladi: glutamat o‘z joyini, glitsin yoki D-serin ko-agonist joyini egallaydi, depolyarizatsiya esa kuchlanishga bog‘liq Mg²⁺ to‘sig‘ini kanaldan chiqaradi. Model tizimlarida KYNA ko-agonist joyining band bo‘lishiga xalaqit beradi; QUIN ayrim NMDA retseptorlaridagi glutamat joyini faollashtira oladi. Shu bois “muvozanat” ikki modda o‘rtasidagi oddiy arifmetik nisbat emas, funksional tarmoqni anglatadi. GluN2A va GluN2B subbirliklarining aniq hissasi miya hududi hamda hujayra kontekstiga qarab farq qiladi; tajribadagi yuqori QUIN konsentratsiyasini tirik miyadagi har bir retseptorning tasviri deb bo‘lmaydi.
Faollashuv uzoq davom etsa, Ca²⁺ sitoskelet va postsinaptik apparatni qayta tuzuvchi fermentlarni ishga tushiradi; mitoxondriyalar ham kirayotgan kalsiyni buferlashga urinadi. Moslashish imkoniyati oshib ketganda CREBga bog‘liq transkripsiya, BDNF/TrkB signallanishi hamda tikanlar va vezikulyar apparatni qo‘llab-quvvatlovchi oqsillar o‘zgaradi. Astrositlarning EAAT2 orqali glutamatni tozalashi yanada kamayganda hujayradan tashqari signal kuchayadi. Dastlabki modelda bu bosqichlar apoptozga olib boradigan to‘g‘ri chiziqqa ulanadi, ammo tirik odamda teskari aloqa, tiklanish va tarmoq o‘zgarishining boshqa sabablari ham aralashadi. Shu bois hujayraviy eksitotoksiklik va klinik depressiya dalilning turli darajalaridir.
Odamlarda nimalar kuzatilgan
Depressiya tadqiqotlarida ayrim guruhlarda yallig‘lanish sitokinlari va kinurenin metabolitlarining o‘zgargani aniqlangan, ammo natijalar turlicha. Steinerning o‘limdan keyingi tadqiqotida og‘ir depressiyada singulat po‘stlog‘ining muayyan hududida QUIN-musbat mikroglia ko‘proq topilgan. Savitz va hamkasblari davolashga chidamli depressiyada KYNA/QUIN nisbati pastroq bo‘lganini xabar qilgan, miya-orqa miya suyuqligi tadqiqotlari esa QUIN va suitsidal xulq o‘rtasidagi bog‘liqlikni tekshirgan. Bu kuzatuvlarning hech biri muayyan QUIN qiymati yoki metabolitlar nisbatini mustaqil tashxis, suitsid xavfi bashorati yoki standart yordamdan voz kechish uchun asosga aylantirmaydi. Anhedoniya mukofot tizimlari va dopamin signallanishi bilan bog‘liq, ammo yallig‘lanish metabolitlari mavjudligi aniq odamda QUIN shu tizimga xalaqit berganini isbotlamaydi. Suitsidal xulq ham ko‘p omilli: miya-orqa miya suyuqligi bo‘yicha tadqiqot natijalarini alohida odamning niyati yoki xavfini aniqlovchi test sifatida ishlatib bo‘lmaydi.
Davolashga chidamli depressiyada infliksimab klinik sinovi bemorlar turlicha ekaniga yaxshi misol: butun tanlanmada ishonchli umumiy foyda ko‘rsatmadi, dastlabki yallig‘lanish profili esa javobni o‘zgartirishi mumkin bo‘lgan omil sifatida muhokama qilindi. Omega-3 tadqiqotlarida ayrim guruhlar va rejimlarda depressiv alomatlar o‘zgargan, biroq meta-tahlildagi signal EPA muayyan bemorda IDO1ni “o‘chirganini” isbotlamaydi. Yallig‘lanishga qarshi davolash va kinurenin almashinuvini o‘zgartirish psixoterapiya hamda standart farmakoterapiya bilan birga tadqiqot mavzusi bo‘lib qolmoqda.
Laboratoriya ko‘rsatkichlarini qanday talqin qilish kerak
Kyn/Trp nisbati odatda bir namunadagi kinurenin va triptofan konsentratsiyalaridan hisoblanadi. U ba’zan kinurenin yo‘li faolligining bilvosita ko‘rsatkichi sifatida ishlatiladi, ammo unga TDO, ovqatlanish, buyrak faoliyati, o‘lchash usuli va miyadan tashqaridagi yallig‘lanish ta’sir qiladi. Teskari KYNA/QUIN va QUIN/KYNA nisbatlarini farqlash zarur: bir xil muhitda bir xil analitlar o‘lchansa, birining ortishi ikkinchisining kamayishini anglatadi. Plazma va miya-orqa miya suyuqligini bitta formulaga qo‘shmaslik, tadqiqot chegaralarini universal klinik me’yor sifatida taqdim etmaslik kerak.
Ko‘rsatkich
Nimani ko‘rsatishi mumkin
Nimani isbotlamaydi
Bir muhitdagi triptofan, kinurenin va Kyn/Trp
Substrat mavjudligi va namuna olingan paytdagi yo‘lning umumiy siljishi
Alohida IDO1 faolligi yoki sinapsdagi serotonin miqdori.
KYNA, QUIN va ularning nisbati
Metabolitlar taqsimotini tadqiqot doirasida tavsiflash
Faqat qon zardobiga qarab muayyan bemordagi neyrotoksiklikni.
hs-CRP, IL-6
Tizimli yallig‘lanish kontekstini
Depressiya sababini yoki miyadagi sitokin konsentratsiyasini.
NfL
Tegishli ko‘rsatmalarda neyron tuzilmalarining shikastlanishini
Aynan QUIN sababli shikastlanishni; ko‘rsatkich yosh va kasallikka bog‘liq.
Bu tahlillar tadqiqotda qo‘llanishi yoki boshqa klinik ko‘rsatmalar asosida buyurilishi mumkin, ammo depressiya uchun standartlashtirilgan diagnostik “kinurenin algoritmi” yo‘q. Shifokor alomatlar, ularning davomiyligi, o‘ziga zarar yetkazish xavfi, hamroh kasalliklar va dorilarni baholaydi. O‘z joniga qasd qilish haqidagi fikrlar biomarkerlarni mustaqil talqin qilishni emas, zudlik bilan professional yordamni talab qiladi.
Oqimni boshqa tarmoqqa yo‘naltirish mumkinmi?
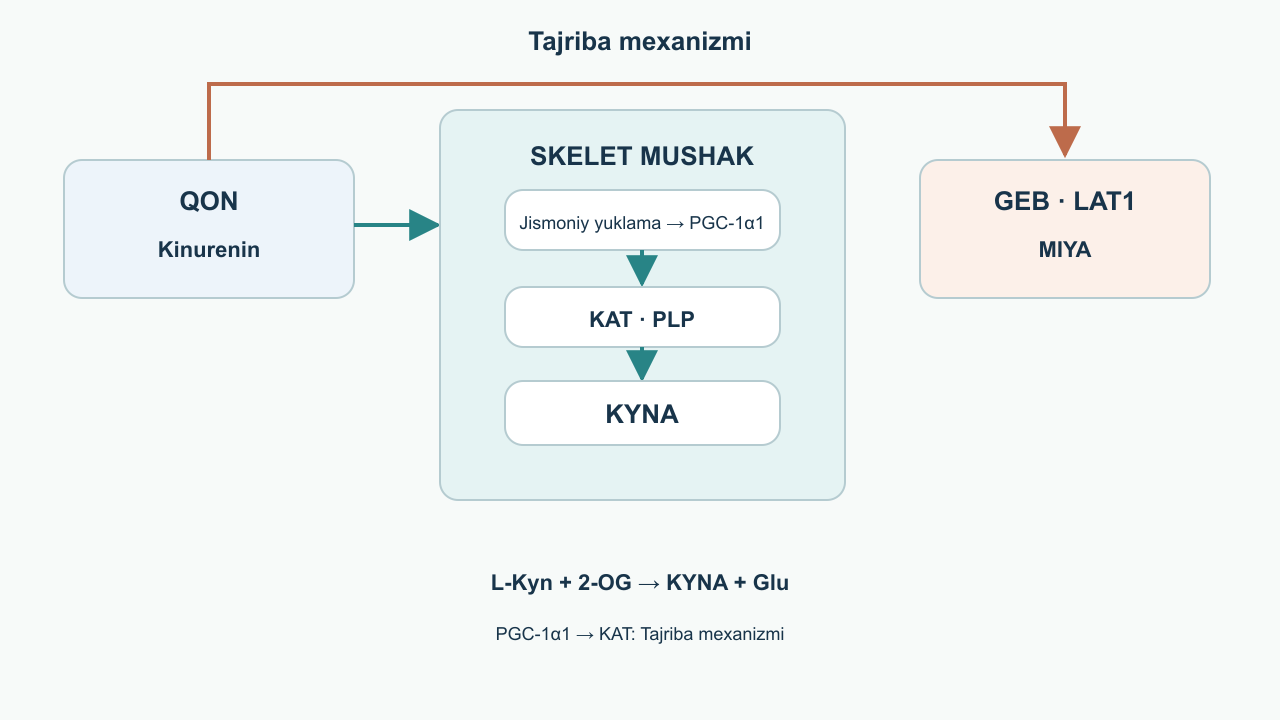
Agudelo va hamkasblari sichqonlarda mushakdagi PGC-1α1 ekspressiyasi KATni ko‘paytirishi, aylanib yurgan kinureninning bir qismini KYNAga aylantirishi va stressga chidamlilik bilan bog‘liqligini ko‘rsatgan. Bu mushak–miya aloqasining qiziqarli misoli: periferik aylantirish markaziy tarmoqlarga yetadigan substratni kamaytirishi mumkin. Taklif qilingan modelda mushak qisqarishi AMPK va CaMK bilan bog‘liq energiya hamda kalsiy signallarini faollashtiradi, keyin koaktivator PGC-1α1 ekspressiyasi ortadi. Mushak genlarining boshqarilishi KAT faolligini oshiradi: qondagi mavjud kinureninning bir qismi KYNAga aylanadi, u esa butun qon–miya to‘sig‘idan ancha kam o‘tadi. Shu tariqa markaziy tarmoqlar uchun ehtimoliy substrat manbalaridan biri kamayadi. Biroq bu tajriba odamlardagi depressiyani davolash uchun aniq mashq “zonasi”, tez-tezligi yoki davomiyligini belgilamaydi. Jismoniy faollik umumiy klinik sabablarga ko‘ra uyg‘unlashtirilgan yordam rejasining bir qismi bo‘lishi mumkin, uning ta’sirini faqat kinurenin bilan izohlab bo‘lmaydi.
Ro 61-8048 va JM6 kabi KMO ingibitorlari klinikagacha bo‘lgan modellarda metabolitlar va natijalarni o‘zgartirgan. Ular depressiyani mustaqil davolash uchun tayyor dori emas. Kurkumin, resveratrol, EGCG, sulforafan va N-atsetilsistein laboratoriya tizimlarida turlicha yallig‘lanishga qarshi yoki antioksidant ta’sir ko‘rsatgan; bu moddalarning istalgan shaklini qabul qilish odamlarda miya QUINini kamaytiradi yoki psixiatrik yordam o‘rnini bosadi degani emas. Taklif etilgan nishonlar turlicha: EPA uchun yallig‘lanishni bartaraf etishga ixtisoslashgan mediatorlar va sitokin signallari; kurkumin va EGCG uchun tajriba tizimlaridagi NF-κB yoki JAK/STAT; resveratrol uchun SIRT1 va yallig‘lanish javobi; sulforafan uchun Nrf2ga bog‘liq antioksidant fermentlar muhokama qilinadi. Bu signal yo‘llarining hech biri moddalardan birini odamlarda isbotlangan IDO1 ingibitori qilmaydi. Mahsulot tarkibi, biologik o‘zlashtirilishi, qabul muddati va to‘qimaga yetib borishi natijalarni klinikaga ko‘chirishni cheklaydi. N-atsetilsistein uchun glutation oldmoddasi ta’minoti va glutamat almashinuviga ta’siri muhokama qilinadi; sistin–glutamat antiporteri va EAAT2 yo‘li bu modda odamlarda QUINdan sinapslarni klinik jihatdan himoya qilishini isbotlamaydi. Konsentrlangan ekstraktlarning o‘z cheklovlari va o‘zaro ta’sirlari mavjud; ayniqsa xavfsiz dozani hujayra tajribasidan chiqarib bo‘lmaydi.
NMDA kanalining Mg²⁺ ionlari bilan fiziologik to‘silishi og‘iz orqali magniy qabul qilish depressiyada retseptorni QUINdan “himoya qiladi” degani emas. PLP KAT va KYNUda, FAD esa KMOda qatnashadi, ammo yuqori vitamin dozalari bilan ushbu fermentlarni davolash maqsadida “almashtirish” isbotlanmagan. Oziq modda tanqisligi odatiy klinik baholash doirasida ko‘rib chiqilishi mumkin, lekin kinurenin yo‘lini muayyan tarzda tuzatishga va’da berilmaydi.
Aralashuvlar va dalillarni taqqoslash
KMOni bevosita to‘sish 3-HK hosil bo‘lishidan yuqorida turgan fermentni nishonga olgani uchun mantiqli tadqiqot yo‘nalishidir. Ingibitor tajribalarida periferik va markaziy metabolitlar o‘zgaradi, biroq dorining to‘siqdan o‘tishi, Kyn tashilish yo‘nalishi va KAT faolligining kompensator o‘zgarishi alohida tahlil qilinishi kerak. Zwilling tadqiqoti neyrodegeneratsiyaning tajribaviy modellarida himoya ta’sirlarini ko‘rsatgan; uni davolashga chidamli depressiyada o‘tkazilgan klinik sinov deb qayta nomlab bo‘lmaydi. To‘qimadagi QUIN kamaygan taqdirda ham, odamlarda xavfsizlik va muhim alomatlarga foyda ko‘rsatilmaguncha u oraliq biomarker bo‘lib qoladi.
Omega-3 bo‘yicha klinik savol mexanistik savoldan farq qiladi. Meta-tahlillar turli mahsulotlar va populyatsiyalardagi depressiv alomatlarni o‘rganadi; ular har bir ishtirokchida rezolvinlar IDO1ni albatta bostirishini o‘lchamaydi. O‘simlik polifenollarida noaniqlik zanjiri boshqacha: boshlang‘ich molekula, uning metabolitlari, qondagi konsentratsiyasi va miyaga yetishi sezilarli farq qilishi mumkin. EPA, kurkumin, resveratrol, EGCG, sulforafan, NAC, magniy va vitaminlarni birlashtirgan “integrativ” aralashma yagona kinurenin protokoli sifatida sinalmagan. Hujayraviy mexanizmlarni qo‘shib hisoblash bunday aralashma samarali yoki xavfsiz ekaniga dalil yaratmaydi.
Amaliy xulosa
Kinurenin yo‘li immun javob, triptofan almashinuvi va glutamatergik uzatishni bog‘laydi. Ferment reaksiyalari va metabolitlarning ayrim hujayraviy ta’sirlari ancha ishonchli tasvirlangan; odamlardagi depressiya bilan aloqalar murakkabroq bo‘lib, kichik guruh, namuna va tadqiqot usuliga bog‘liq. Shu sabab Kyn/Trp yoki QUIN/KYNAni shaxsiy “neyroyallig‘lanish indeksi” sifatida ishlatmaslik, mexanistik sxemani qo‘shimcha vosita buyurish deb qabul qilmaslik kerak.
Depressiv alomatlari bor inson uchun kam uchraydigan metabolitlar panelini mustaqil tanlashdan ko‘ra keng qamrovli klinik baholash va foydasi isbotlangan davolash muhimroq. Kinurenin tizimini o‘rganish kelajakda bemorlarni tanlashni yaxshilashi va yangi davolash nishonlarini ochishi mumkin. Hozircha uning asosiy amaliy qiymati immun, metabolik va neyron jarayonlarini bir-biridan uzib ko‘rib bo‘lmasligini aniqroq anglashga yordam berishidir.
Sharh qanday tayyorlandi
Bu — ferment reaksiyalari, glia, klinikagacha bo‘lgan aralashuvlar va klinik kuzatuvlar haqidagi avvaldan jamlangan 18 ta nashr tanloviga asoslangan kinurenin yo‘lining narrativ sharhidir. Tahririy ish 2026-yil 4-oktabrda yakunlandi. Oldindan belgilangan protokol bo‘yicha tizimli qidiruv, meta-tahlil va har bir ishning xolislik xavfini rasmiy baholash o‘tkazilmadi; manbalar ro‘yxati to‘liq emas.
Hujayra va hayvon mexanizmlari odamlardagi kuzatuvlardan alohida ko‘rib chiqiladi. Yallig‘lanish markeri va alomatlar o‘rtasidagi bog‘liqlik sababiylikni yoki aralashuv samaradorligini isbotlamaydi. Talqinda hujayra kompartmenti, o‘lchash usuli, populyatsiya va yakuniy ko‘rsatkich muhim. Bitta biokimyoviy sxemadan tasdiqlanmagan diagnostik chegaralar yoki davolash va’dalari chiqarilmaydi; tadqiqotning ushbu tanlovga kiritilmagani ham savol bo‘yicha dalillar yo‘q degani emas.
Tez-tez beriladigan savollar
Kyn/Trp orqali miyadagi IDO1 faolligini aniqlash mumkinmi?
Yo‘q. Bu nisbat tekshirilayotgan namunadagi umumiy metabolik siljishni aks ettiradi; unga boshqa ferment va omillar ham ta’sir qiladi, qon esa miya to‘qimasining bevosita o‘lchovi emas.
KYNA doim foydali, QUIN esa doim zararlimi?
Yo‘q. QUIN NAD⁺ sintezida qatnashadi, ortiqcha KYNA esa me’yoriy uzatishni buzishi mumkin. Mahalliy muvozanat va kontekst muhim; ularni zardobdagi bitta raqamdan bilib bo‘lmaydi.
Depressiyani tashxislash uchun tan olingan kinurenin paneli bormi?
Universal chegaralari bo‘lgan standart klinik algoritm yo‘q. Yordam haqidagi qaror alomatlar, xavf va hamroh kasalliklarni baholashga asoslanadi.
Yo‘q. Mexanizm asosan tajriba modelida ko‘rsatilgan; inson uchun jismoniy faollik jadalligi va hajmi odatdagi klinik ko‘rsatmalarga qarab tanlanadi.
IDO1 yoki KMOni bostirish uchun qo‘shimchalar ichish kerakmi?
Hujayra va hayvon ma’lumotlari qo‘shimchalarni o‘zboshimchalik bilan qabul qilish inson miyasida bu tarmoqlarni o‘zgartirishi yoki depressiya davosining o‘rnini bosishini tasdiqlamaydi.