Leptinga rezistentlik: SOCS3, POMC va gipotalamus — NutriFit
Leptinga rezistentlik: gipotalamus yallig‘lanishi, SOCS3 va POMC
Leptin va LEPR tuzilishi, JAK2/STAT3, PI3K/FoxO1, AMPK, POMC ishlovi va MC4R. SOCS3, PTP1B, TCPTP, glia, to‘r stressi va miyaga yetkazilish signalga qanday ta’sir qiladi; hayvon tajribalari, inson semizligi va vazn yo‘qotish moslashuvi farqlari.
Leptin yog‘ to‘qimasidagi energiya zaxirasini ovqat iste’moli, energiya sarfi va neyroendokrin moslashuvni boshqaradigan neyron tizimlari bilan bog‘laydi. Keng tarqalgan semizlikda qondagi leptin ko‘pincha yuqori bo‘lsa ham, qo‘shimcha gormon kutilganidan kamroq javob beradi. Leptinga rezistentlik shu javobning susayishini anglatadi. U bitta qon tahlili bilan aniqlanadigan yagona tashxis emas, bir necha jarayonni qamrab oladi. Tug‘ma leptin yetishmovchiligi, retseptor nuqsonlari, sichqonlardagi parhezga bog‘liq semizlik va inson vazn yo‘qotgandan keyingi moslashuv turli holatlardir.
Maqola gormon va retseptordan hujayra ichidagi yo‘llarga, yoysimon yadro neyronlariga va signalni susaytiruvchi mexanizmlarga o‘tadi. Molekulyar sababiy dalillarning ko‘pi hujayralar va kemiruvchilardan olingan. Insondagi endokrin va tasvirlash tadqiqotlari tegishli bog‘liqliklarni ko‘rsatadi, ammo har bir bemorda to‘liq molekulyar zanjirni isbotlamaydi. Tajribaviy nishon o‘z-o‘zidan davolash protokolini belgilamaydi.
1. Molekula va endokrin signal
Sichqonning ob geni va insondagi LEP gomologining klonlanishi yog‘ to‘qimasi vaznning endokrin boshqaruvida qatnashishini ko‘rsatdi (Zhang et al., 1994). Inson LEP geni 7q32.1 hududida joylashgan. 167 aminokislotali prekursor 21 qoldiqli signal peptidini yo‘qotgach, taxminan 16 kDa li 146 qoldiqdan iborat yetuk leptin qoladi. Qondagi gormonning katta qismini oq adipotsitlar ishlab chiqaradi. Yog‘ massasidan tashqari joriy energiya muvozanati, insulin, jins va sutkalik ritmlar ham sekretsiyaga ta’sir qiladi.
Leptin sitokinlarga xos to‘rt spiral tuzilishga ega. 1AX8 leptin-E100 ning rentgen tuzilmasidir, butun retseptor kompleksi emas (Zhang et al., 1997). Disulfid bog‘i yetuk leptindagi Cys96 va Cys146 ni tutashtiradi; prekursor va yetuk oqsil raqamlarini aralashtirish xatoga olib keladi. Bog‘ konformatsiyani qo‘llab-quvvatlaydi, lekin alohida mutatsiyalarni to‘liq faolsizlik deb faraz qilish o‘rniga tajribada baholash kerak.
Qonda erkin leptin ham, eruvchan LEPR bilan bog‘langan leptin ham mavjud. Shu sababli umumiy konsentratsiya miyaga yetib boradigan miqdorga teng emas. Considine et al. (1996) yog‘ massasi bilan bog‘liqlik va semizlikda yuqori konsentratsiyalarni aniqladi. Guruhning o‘rtacha qiymatlari universal me’yoriy chegaralar emas; zardobdagi yuqori leptin gipotalamus STAT3 faolligini bevosita o‘lchamaydi.
2. LEPR izoformalari va tuzilishi
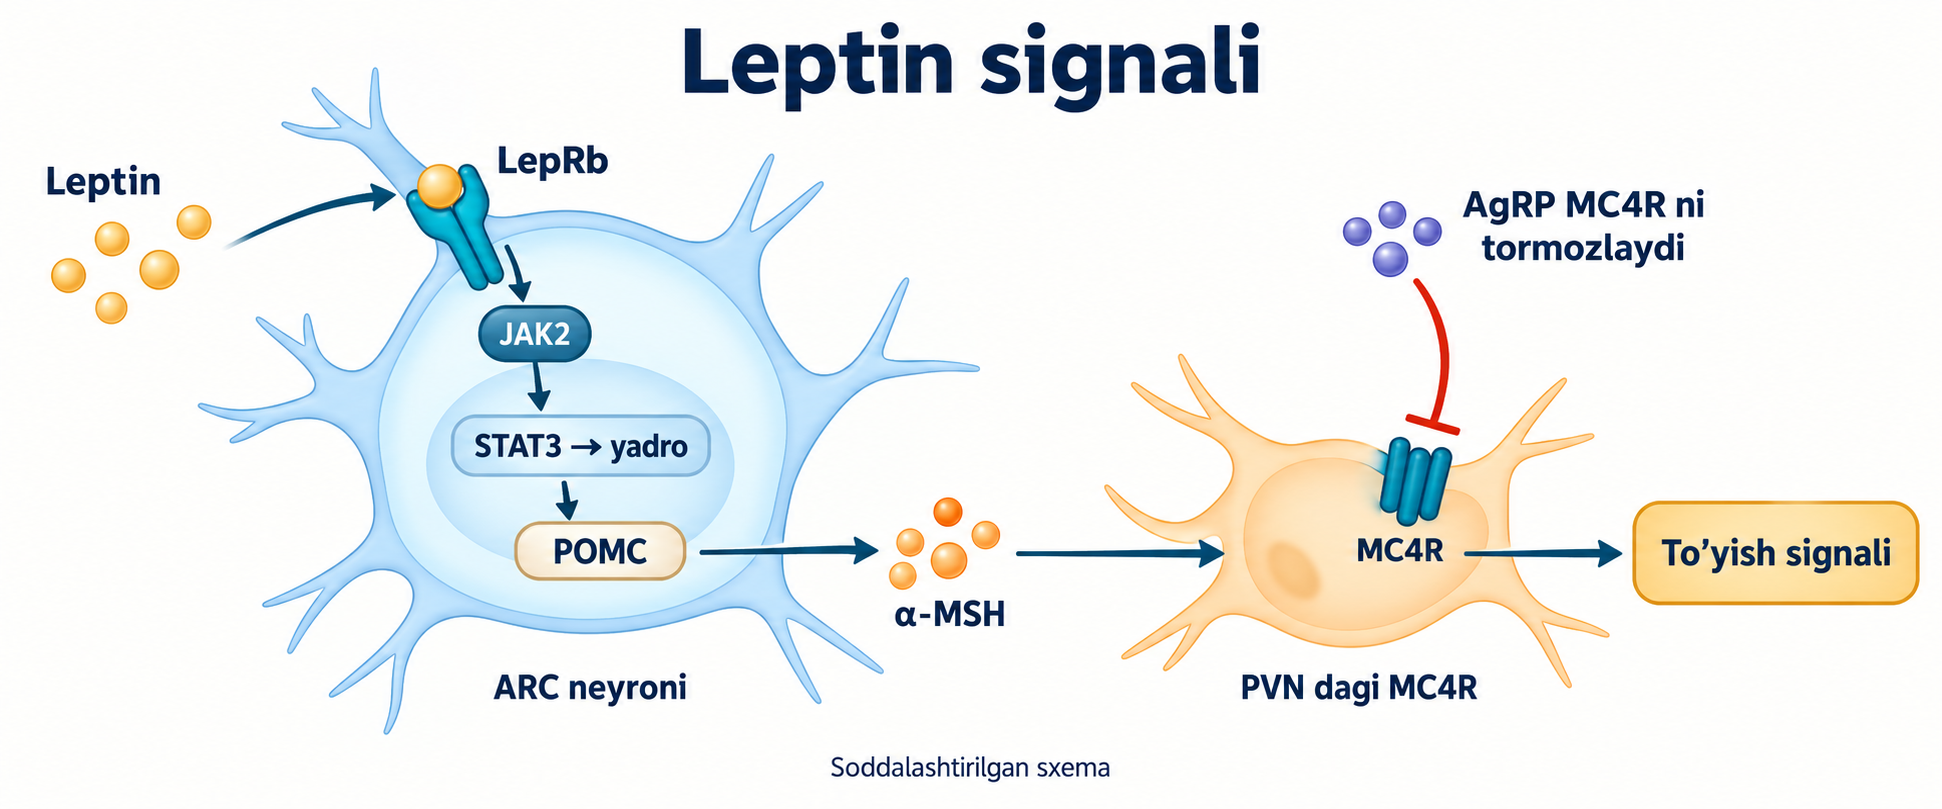
Tartaglia et al. (1995) aniqlagan retseptor I sinf sitokin retseptorlariga kiradi; inson LEPR geni 1p31.3 da joylashgan. Membranadagi izoformalar tashqi bog‘lanish apparatini ulashadi, ammo hujayra ichidagi qismlari farq qiladi. Uzun LepRb kanonik JAK2–STAT signalini ta’minlaydi. Qisqa shakllar taqsimlanish, ichkariga olinishi va boshqa vazifalarda qatnashadi; ular shunchaki faol bo‘lmagan nusxalar emas.
Eruvchan retseptor muqobil splaysing yoki ektodomen ajralishidan paydo bo‘lishi mumkin; bu yo‘llarning ulushi turlar orasida farqlanadi. Qisqa izoformalar miya to‘sig‘i orqali yetkazilishda o‘rganilgan, lekin insondagi barcha transportni faqat LepRa/LepRc zimmasiga yuklash dalillardan oshib ketadi.
Tashqi tuzilma CRH1/CRH2 sitokin-retseptor gomologiyasi hududlari, immunoglobulinga o‘xshash domen va fibronektin modullarini o‘z ichiga oladi. CRH2 bog‘lanishda qatnashadi, domenlarning joylashishi faol kompleksga imkon beradi. Mancour et al. (2012) signal kompleksi arxitekturasini tekshirgan. PDB 3V6O retseptor fragmenti va antitananing rentgen tuzilmasi, to‘liq LepRb krio-EM tuzilmasi emas; dastlabki manbada turli ishlar aralashtirilgan. Bu fragment tirik neyron membranasidagi yagona universal stexiometriyani belgilamaydi.
3. JAK2, STAT3 va parallel tarmoqlar
LepRb o‘z tirozin-kinaza faolligiga ega emas. Membranaga yaqin motivlar JAK2 bilan birikadi. Ligandga bog‘liq qayta joylashish kinaza faollashuvi, faollashuv halqasidagi Tyr1007/Tyr1008 fosforlanishi va keyin retseptorda fosfotirozinli birikish joylari paydo bo‘lishiga yordam beradi. LepRb ning an’anaviy raqamlanishida Tyr1138 STAT3 ni jalb qiladi, Tyr1077 STAT5 bilan, Tyr985 esa SHP2 va SOCS3 bilan bog‘liq. Qoldiq raqamlari aniq tur va ketma-ketlikka nisbatan talqin qilinadi.
Fosfat ko‘chirishning umumiy reaksiyasi:
Protein-Tyr-OH+ATPkinaseProtein-Tyr-OPO32−+ADP.
Bu reaksiya sxemasi, JAK2 tezligining o‘lchovi yoki Km o‘n besh baravar tushishini tasdiqlovchi dalil emas. STAT3 ning Tyr705 bo‘yicha fosforlanishi dimer hosil bo‘lishi va Socs3 hamda energiyaga oid neyron dasturlarini qamrab oluvchi transkripsion boshqaruvni ta’minlaydi. Sichqonda retseptor joyi mutatsiyasi yo‘lning ahamiyatini ko‘rsatadi (Bates et al., 2003). Bu hayvonlarda energiya muvozanati jiddiy buziladi, ammo db/db to‘liq takrorlanmaydi: boshqa yo‘llar reproduktiv va ayrim qo‘shimcha leptin ta’sirlarini boshqaradi.
SHP2 retseptorni Ras–Raf–MEK–ERK bilan bog‘laydi; STAT5 boshqa transkripsion tarmoqni beradi. Ularning ahamiyati hujayra populyatsiyasiga qarab farqlanadi. Barcha LepRb neyronida bir xil natija beradigan yagona chiziqli yo‘l yetarli model emas.
4. PI3K, FoxO1, PDE3B va mTOR
Leptin va insulin signallari IRS/PI3K da tutashadi. PI3K PIP2 ni PIP3 ga aylantirib, PDK1 va Akt ning membranaga jalb qilinishini yengillashtiradi. Faol Akt FoxO1 joylashishini o‘zgartirishi, 14-3-3 bilan bog‘lanish va yadrodan chiqishni qo‘llab-quvvatlashi mumkin. Gipotalamus tajribalari FoxO1 ni energiya holati va Agrp/Pomc ekspressiyasi bilan bog‘laydi (Kitamura et al., 2006; Kim et al., 2006). STAT3 transkripsion omildir, FoxO1 ni bevosita fosforlaydigan kinaza emas.
PDE3B siklik AMP ni gidrolizlaydi va ayrim leptin javobi modellariga hissa qo‘shadi. Akt–TSC–Rheb–mTORC1 signalni S6K va 4E-BP1 orqali oqsil sintezi bilan bog‘laydi. Lekin mTOR ta’siri vaqt va neyron turiga bog‘liq: uzoq faollashuv sezgirlikni avtomatik yaxshilamaydi. Hayvon miyasidagi PI3K yoki mTOR ni o‘zgartirish inson uchun xavfsiz aralashuvni isbotlamaydi.
5. AMPK va gipotalamusda lipidlarni sezish
Leptin tajribaviy gipotalamus tizimlarida AMPK ni susaytiradi, mushak javoblari esa AMPK faollashuvini o‘z ichiga olishi mumkin (Minokoshi et al., 2004). AMPK ning atsetil-KoA-karboksilazani tormozlashini olib tashlash malonil-KoA hosil bo‘lishini oshirishi mumkin:
Acetyl-CoA+HCO3−+ATPACCMalonyl-CoA+ADP+Pi.
ACC atsetil-KoA-karboksilaza, Pi noorganik fosfatni anglatadi. Bu uglerod almashinuvini lipid sezish bilan bog‘laydi, ishtahani hisoblash formulasi emas. Neyrondagi CPT1c asosan malonil-KoA sensori sifatida muhokama qilinadi; uni odatiy mitoxondrial CPT1 atsil guruhi transportiga tenglashtirish kerak emas. Simpatik chiqishlar UCP1 ga bog‘liq termogenezga ta’sir qilishi mumkin, ammo uning miqdorini bitta leptin tahlilidan bilib bo‘lmaydi.
6. Yoysimon yadro va melanokortin tarmog‘i
Yoysimon yadro — ARC — median eminensiya va uchinchi qorincha yonida yotadi. Fenestrali tomirlar va tanitsit to‘siqlari tartibga solinadigan sezish imkonini beradi; ular plazmadagi har bir oqsil har bir ARC neyroniga erkin kirishini anglatmaydi.
POMC va AgRP/NPY/GABA populyatsiyalari muhim va turli xususiyatlarga ega. POMC/CART qulay klassik qisqartma, ammo barcha hujayralarning retseptori va peptid to‘plami bir xil emas. Leptin ayrim POMC neyronlarini bevosita va tarmoq orqali faollashtiradi (Cowley et al., 2001), boshqa hujayralarda ion oqimlari va tormozlovchi kirishlarni o‘zgartiradi. KATP kanallari ayrim javoblarga qatnashadi; qat’iy membrana potensiali siljishi yoki sakson foizlik tormozlanish butun populyatsiyani tasvirlamaydi.
POMC bir nechta peptidning prekursoridir. PCSK1 kodlaydigan PC1/3 ACTH hosil bo‘ladigan boshlang‘ich parchalanishni amalga oshiradi; PC2 ishlovni davom ettiradi, karboksipeptidaza E asosiy qoldiqlarni olib tashlaydi, PAM amidlanishda qatnashadi. Keyingi atsetillanish α-MSH xususiyatlarini o‘zgartiradi. Shuning uchun PC1/3 yolg‘iz POMC ni yetuk α-MSH ga aylantirmaydi. Har bir atsetillangan shaklda affinitet universal o‘ttiz-qirq baravar ortishi ham aniqlanmagan.
α-MSH PVN va boshqa sohalardagi MC4R ni faollashtiradi. Kanonik Gs–adenilat-siklaza–cAMP hissa qo‘shadi, ammo MC4R hujayra fiziologiyasi yagona PKA/TRPC5 yo‘lidan kengroq. AgRP antagonist va tegishli tizimlarda teskari agonistdir (Ollmann et al., 1997). NPY o‘z retseptorlari, GABA esa tormozlovchi sinapslar orqali ishlaydi. Teskari agonizm faollikni bazal darajadan pasaytiradi; cAMP konsentratsiyasi hech qachon manfiy bo‘lmaydi.
Sichqonda Mc4r buzilishi va insondagi POMC, PCSK1, MC4R mutatsiyalari tarmoq ahamiyatini ko‘rsatadi (Huszar et al., 1997; Krude et al., 1998; Jackson et al., 1997; Farooqi et al., 2003). Kam uchraydigan monogen holatlar keng tarqalgan semizlikdagi har bir insonda MC4R to‘liq o‘chishini isbotlamaydi.
7. SOCS3: qayta aloqa va tormozlanish
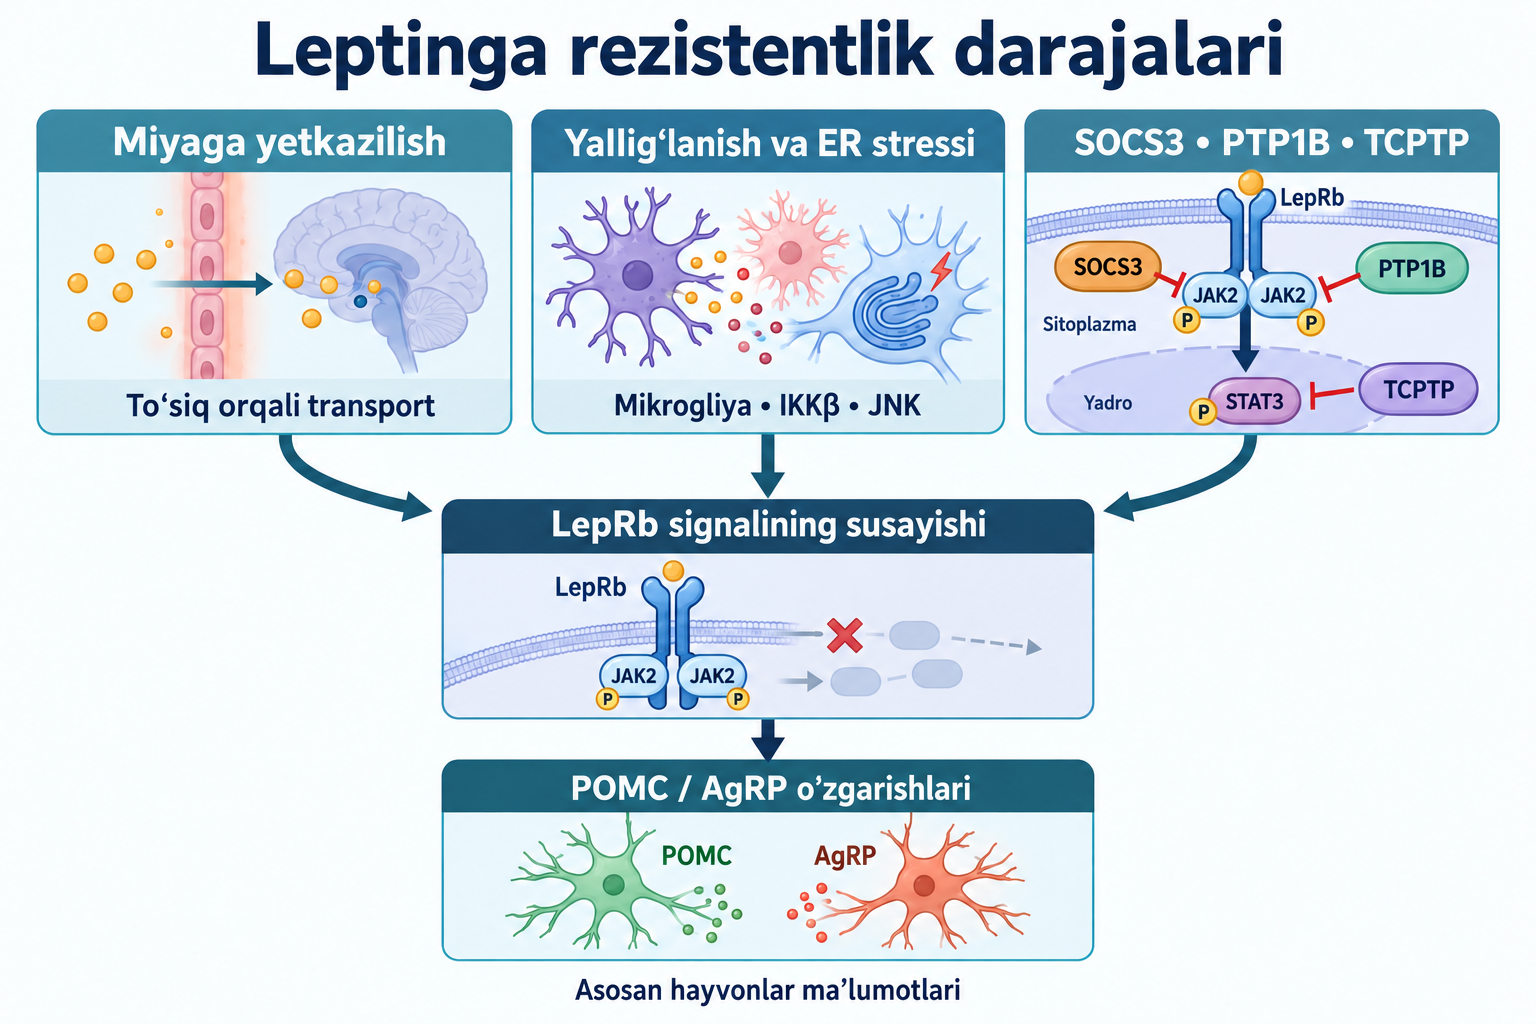
STAT3 SOCS3 hosil bo‘lishini rag‘batlantirib, manfiy qayta aloqani beradi. SH2 domeni fosfotirozin motivlarini taniydi, kinazani tormozlovchi hudud JAK susayishiga qatnashadi, SOCS-boks E3 ubikvitin-ligaza apparatini jalb qiladi. Bu vazifalar signal kuchi va davomiyligini cheklaydi. E3 jalb qilinishi har bir javobdan keyin butun LepRb/JAK2 kompleksi majburiy parchalanadi degani emas.
Kershaw et al. (2013) JAK2 substrat bog‘lash hududining yopilishini ko‘rsatdi. 4GL9 tarkibida LepRb emas, SOCS3–JAK2–gp130 bor. SOCS3 ni ATP cho‘ntagining tiqini deb tasvirlash kerak emas (Babon et al., 2012).
Sichqonning POMC ifodalovchi hujayralarida Socs3 olib tashlanishi leptinga sezgirlik va metabolik ko‘rsatkichlarni yaxshiladi (Kievit et al., 2006). Bu model ichidagi sababiy dalil, umumiy bostirish xavfsizligini isbotlamaydi: SOCS3 ko‘plab immun sitokin signallarini ham cheklaydi.
8. PTP1B va TCPTP: turli joylar
PTPN1 kodlaydigan PTP1B endoplazmatik to‘rning sitoplazmatik yuzasiga mahkamlangan. Katalitik domeni sitozolga qaragan; Cys215 fosfoferment oraliq mahsulotini hosil qiladi, Asp181 kislota-asos katalizida qatnashadi. U JAK2 ni defosforlab, leptin signalini cheklashi mumkin. Endosoma–to‘r kontaktlari substratga yetishishni tushuntiradi, ammo har bir kontakt retseptor parchalanishini anglatmaydi. Sichqon neyronida olib tashlanishi vazn, yog‘ va leptin ta’siriga hissa qo‘shdi (Bence et al., 2006).
PTPN2 kodlaydigan TCPTP ning bir necha izoformasi mavjud; yadrodagi TC45 STAT3 ni defosforlay oladi. Loh et al. (2011) semizlikda gipotalamus TCPTP ko‘tarilishi va PTP1B bilan hamkorligini o‘rgandi. Bir boshqaruvchi retseptorga birikkan kinaza yaqinida, ikkinchisi transkripsion effektorda ishlaydi. Giperleptinemiya, yallig‘lanish va fosfataza o‘zgarishlari javobni susaytirishi mumkin, ammo ularning tartibi va ulushi modelga qarab o‘zgaradi.
Loh et al. (2011) ishiga 2022 yilda tuzatish e’lon qilindi: Figure 4A dagi aktin nazorat bloti teskari aylantirilib, p-JAK2 uchun tubulin nazorati sifatida xato qayta ishlatilgan. Mualliflar to‘g‘ri nazoratni taqdim etib, ilmiy xulosalar o‘zgarmaganini bildirdi (Loh et al., 2022). Shu rasmni baholashda buni hisobga olish kerak; tuzatish odamlarda davolash samaradorligini isbotlamaydi.
Ikki fosfatni olib tashlash ikki suv molekulasini sarflaydi va ikki Pi hosil qiladi. Bu dastlabki muvozanatlanmagan reaksiyani tuzatadi.
9. Yallig‘lanish, glia va to‘r stressi
Thaler et al. (2012) yog‘i ko‘p ovqatlanishdan keyin kemiruvchilarda erta gipotalamus yallig‘lanishini va inson semizligi bilan MRI bog‘liqligini aniqladi. MRI SOCS3 yoki bitta POMC neyroni sezgirligini o‘lchamaydi. Glia javobi dastlab to‘qimani himoya qilishi mumkin; uzoq o‘zgarishlar har bir gliozni qaytmas qilmaydi.
Milanski et al. (2009) to‘yingan yog‘ kislotalarini tajribaviy gipotalamus TLR4 ga bog‘liq yallig‘lanishi bilan bog‘ladi. Ammo palmitatni TLR4 ning isbotlangan bevosita ligandi deb atash kerak emas: Lancaster et al. (2018) retseptor bog‘lanishi bilan TLR4 ga bog‘liq metabolik yallig‘lanish moyilligini ajratdi. Makrofag natijalari mikrogliadagi barcha masalani hal qilmaydi.
IKKβ IκB ni fosforlab, NF-κB ni ozod qiladi. JNK stressni AP-1 va IRS signal o‘zgarishlari bilan bog‘laydi. Zhang et al. (2008) gipotalamus IKKβ/NF-κB ning sichqon energiya nomuvozanatida qatnashishini ko‘rsatdi. Muayyan IRS1 serinining ma’nosi tur va kontekstga bog‘liq; Ser307 universal PI3K o‘chirgichi emas. Yallig‘lanish yo‘llari leptinsiz ham SOCS3 hosil bo‘lishini rag‘batlantirishi mumkin.
Endoplazmatik to‘r sekretsion va membrana oqsillarini buklaydi va o‘zgartiradi. Lipid tarkibi, kalsiy gomeostazi va sintez yuklamasi uning ishini buzishi mumkin. UPR PERK–eIF2α–ATF4, IRE1–XBP1 va ATF6 ni qamrab oladi. Dastlab moslashuvchan javob uzoq stressda CHOP, JNK va hujayra o‘limini faollashtirishi mumkin. Ozcan et al. (2009) to‘r stressini sichqon leptin rezistentligi bilan bog‘ladi. Glikozillanish, ERAD va retseptor tashilishi nuqsonlari ehtimoliy qismlar, barcha fenotiplarning isbotlangan yagona sababi emas.
Astrotsit kontaktlari, mikroglia vazifalari, sinapslar tashkiloti va POMC hujayralarining saqlanishi modelni bitta retseptordan kengaytiradi. Boshqa neyroyallig‘lanish yo‘llari bilan solishtirish umumiy glial jarayonlarni leptinga xos signaldan ajratishga yordam beradi.
10. Miyaga yetkazilish
Endoteliydagi zich birikmalar leptinning erkin diffuziyasini cheklaydi. To‘yinadigan transport, hududiy to‘siqlar, tanitsitlar va retseptorga oid jarayonlar yetkazilishda qatnashadi. Periferik konsentratsiya yuqori bo‘lganda likvor va qon nisbati pasayishi mumkin, ammo likvor ARC interstitsial suyuqligi emas. Barcha insonlar uchun universal Km, plato chegarasi yoki miyaning leptin ochligi tashxisi belgilanmagan.
To‘yinadigan bog‘lanishning tushuntirish modeli:
J=K1/2+CJmaxC.
J transport oqimi, Jmax bir xil birliklardagi cheklovchi qiymat, C konsentratsiya, K1/2 yarim maksimal oqim beruvchi konsentratsiyadir. Bu klinik kalkulyator emas; parametrlarni aniq tajribaviy tizimda o‘lchash lozim.
Banks et al. (2004) triglitseridlar leptin transportini tajribada susaytirishini ko‘rsatdi. Banks et al. (2018) markaziy leptin va insulin retseptori ta’sirlarini ham tekshirgan. Bu VLDL endoteliyni jismonan berkitishi yoki barcha insulin yo‘llari saqlanishini isbotlamaydi. Klinik ko‘rsatma asosida triglitseridni tushirish miya signalini aniq leptin chegarasigacha tiklash isboti emas.
11. Inson: semizlik, yetishmovchilik va vazn yo‘qotish
Keng tarqalgan semizlikdagi yuqori leptin turli ovqatlanish xulqlari bilan birga keladi; doimiy nazoratsiz giperfagiya majburiy emas. Heymsfield et al. (1999) ayrim qatnashchilarda dozaga bog‘liq vazn javobini topgan, shuning uchun sinov butunlay salbiy bo‘lmagan. Javoblar farqlangan va ish semizlik uchun universal davoni belgilamagan.
Tug‘ma yetishmovchilikni to‘ldirish boshqa vaziyat: Farooqi et al. (1999) leptini yo‘q boladagi kuchli ta’sirni tasvirlagan. Ligand qo‘shish nuqsonli retseptorni tuzatmaydi. Bu populyatsiyalarni solishtirishda signal susayishi manbasini aniqlash kerak.
Energiya cheklanganda leptin yog‘ massasidan tezroq pasayishi mumkin. Vazn yo‘qotgandan keyin bu kuchliroq ochlik, simpatik va qalqonsimon bez o‘zgarishlari hamda mushak samaradorligi bilan birga kechishi mumkin. Rosenbaum et al. (2005) shunday moslashuvlarni, Rosenbaum et al. (2008) ovqat tasvirlariga miya javobini tekshirgan. «Leptin chuquri» universal chegarali belgilangan sindrom emas, metaforadir. fMRI o‘zgarishi ochlik butunlay yo‘qolishi yoki qayta vazn olishning isbotlangan oldini olishni anglatmaydi.
Jiddiy energiya tanqisligida past leptin reproduktiv tizimni vositachi neyron zanjirlari orqali susaytirishi mumkin; bu faqat GnRH ga bevosita ta’sir emas. Qalqonsimon bez, simpatik, jinsiy va HPA javoblari tanqislik muddati va populyatsiyaga bog‘liq. Universal 300–500 kkal/kun sarf pasayishi yoki endokrin inqiroz individual farqlarni noto‘g‘ri ifodalaydi. Qayta vazn olish ehtimoliy hodisa: muhit, yordam, xulq va davolash ham muhim; bitta gormon uni muqarrar qilmaydi.
12. Tajribaviy davolash nishonlari
4-PBA va TUDCA kimyoviy shaperonlari, to‘r stressini kamaytirish, SOCS3 boshqaruvchilari va fosfatazalar mexanizmni tekshirishga yordam beradi. Sichqon javobining yaxshilanishi insondagi oziq qo‘shimchasi ta’sirini belgilamaydi.
Tripterygium wilfordii dan olingan selastrol va vitaferin A sichqon leptin sensitayzerlari sifatida tekshirilgan (Liu et al., 2015; Lee et al., 2016). Ta’sir modelga bog‘liq va bitta bevosita nishon bilan cheklanmaydi. Hayvon iste’moli va vaznidagi katta o‘zgarish inson dozasini aniqlamaydi; ashvaganda ekstrakti tozalangan vitaferin A emas. Ursol kislota hujayra tizimlarida metabolik faol triterpen va ferment ingibitori sifatida o‘rganiladi. Kuniga bir necha marta 150–300 mg bilan leptin rezistentligini davolash klinik rejimi belgilanmagan.
DHA membrana biologiyasiga va D-seriyali rezolvinlar hamda protektinlarni o‘z ichiga oluvchi yallig‘lanish yakunlanishi mediatorlari prekursorlariga hissa qo‘shadi. MFSD2A LPC bilan bog‘langan uzun zanjirli yog‘ kislotalarini tashiydi (Nguyen et al., 2014). Triglitserid yoki etil-efir DHA kapsulasi uning bevosita substrati emas. Cintra et al. (2012) hayvonlarda to‘yinmagan yog‘larni o‘rgangan, inson gipotalamusidagi STAT3 tiklanishini emas. M1/M2 atamalari mikroglia holatlarini haddan tashqari soddalashtiradi.
Kurkumin tajribada yallig‘lanishga qarshi ta’sir ko‘rsatadi. Ayrim preparatlarning yuqori biologik o‘zlashtirilishi inson ARC sida davolovchi konsentratsiya, u yerda IKKβ/JNK tormozlanishi yoki rezistentlik yo‘qolishini isbotlamaydi. Taurin uchun ham shu farq mavjud: endogen vazifalar ixtiyoriy dozani bu holat uchun tasdiqlangan kimyoviy shaperon qilmaydi.
13. Fruktoza, faollik va uyqu
Jigardagi fruktoza almashinuvida KHK qatnashadi; tegishli yuklama lipid sintezi va VLDL sekretsiyasini oshirishi mumkin. Shapiro et al. (2008) kalamushlarda fruktoza bilan ovqatlanish va leptin javobini o‘rgangan. Ish barcha mevalardan voz kechish inson to‘sig‘ini to‘liq tiklashini ko‘rsatmaydi. Parhez ta’siri energiya, mahsulot shakli va almashtirishga bog‘liq. Vaqt bilan cheklangan ovqatlanish, jismoniy faollik va triglitseridni kamaytirish metabolik maqsadlarga ega bo‘lishi mumkin, ammo 16/8, Zone 2 yoki 1,0 mmol/l dan past triglitserid maqsadi universal tasdiqlangan leptin tiklash protokoli emas.
Uyqu ishtaha va endokrin boshqaruv bilan bog‘liq. Taheri et al. (2004) kohorta bog‘liqliklarini, Spiegel et al. (2004) sog‘lom yosh erkaklardagi qisqa uyqu cheklanishini tekshirgan. Dizaynlar farq qiladi; gormon o‘zgarishi foizlari hammaga tegishli emas va retseptor tiklanishini isbotlamaydi. Sutkalik tebranishlar ovqatlanishga ham bog‘liq. Qat’iy cho‘qqi vaqtlari, uyqudan to‘rt soat oldin majburiy kechki ovqat va ko‘k yorug‘likni to‘sish SOCS3 ga bog‘liq rezistentlikni yo‘qotuvchi usul sifatida belgilanmagan. Sirkadiyal signal va melatonin ritmlarni tushuntiradi, ammo leptin javobi tadqiqotini almashtirmaydi.
14. Dalil darajalarini solishtirish
Daraja
Nima o‘rganiladi
Insonga qo‘llash chegarasi
Molekula va tuzilma
Leptin, LEPR, JAK2, SOCS3, fosfatazalar
Kompleks fragmenti butun tirik neyronni tasvirlamaydi
Neyron yo‘li
STAT3, PI3K/FoxO1, POMC ishlovi, MC4R
Populyatsiyalar va ta’sir davomiyligi farq qiladi
Glia va to‘r
IKKβ/NF-κB, JNK, UPR, sinaps o‘zgarishlari
Sababiy tajribalar asosan kemiruvchilarda
To‘siq
To‘yinadigan transport va lipid ta’sirlari
Universal klinik oqim chegarasi yo‘q
Inson vazn yo‘qotishi
Ochlik, energiya sarfi, gormonlar, fMRI
Yagona sindrom yoki muqarrar qayta vazn olish emas
Aralashuv
Yetishmovchilikni to‘ldirish va sensitayzer tajribalari
Populyatsiyalar turli; sichqon dozasi inson retsepti emas
Mexanizm xaritasi savol beradi: gormon yetishmayaptimi, yetkazilish o‘zgarganmi, hujayra ichidagi javob susayganmi yoki tarmoq chiqishi buzilganmi? U leptin, HOMA-IR yoki CRP asosida tashxis qo‘ymaydi. Bu markerlar mahalliy ARC yallig‘lanishini o‘lchamaydi va zardob leptinini 10–12 ng/ml dan pastga tushirish maqsadini belgilamaydi. Semizlik va hamroh buzilishlarni baholash klinik kontekstni talab qiladi; dastlabki nutrasevtik algoritm tasdiqlangan maqomga ega emas.
Leptinga rezistentlik yetarli energiya zaxirasiga qaramay susaygan neyron javobining turli izohlarini birlashtiradi. Uning kuchi retseptor signali, glial muhit, yetkazilish va melanokortin tarmog‘ini bog‘lashidir. Asosiy chegarasi individual insonga o‘tkazish: klinik tadqiqotlar ta’sir, xavfsizlik va tegishli populyatsiyani aniqlamaguncha qiziqarli nishonlar tadqiqot nishoni bo‘lib qoladi.
Tez-tez beriladigan savollar
Bitta qon tahlili leptin rezistentligini aniqlaydimi?
Yo‘q. Zardob leptini yog‘ massasi va boshqa omillarga bog‘liq, ammo ARC ga yetkazilish yoki hujayra javobini bevosita o‘lchamaydi. Klinik kontekst kerak.
Nega AgRP teskari agonist?
Tegishli tajribaviy tizimlarda u MC4R bazal faolligini kamaytiradi. Bu bazal darajadan pasayish, cAMP konsentratsiyasining manfiy bo‘lishi emas.
Leptin semizlikdagi har bir insonga yordam beradimi?
Tug‘ma yetishmovchilikni to‘ldirish keng tarqalgan semizlikdan farq qiladi. Doza sinovida javoblar turlicha bo‘lgan va universal rejim belgilanmagan.
DHA va kurkumin isbotlangan davomi?
Membrana va yallig‘lanish mexanizmlari qiziqarli, ammo inson gipotalamusidagi rezistentlikni qaytarish yoki universal dozani isbotlamaydi.
Vazn yo‘qotgandan keyin past leptin vazn qaytishini muqarrar qiladimi?
Yo‘q. U ochlik va energiya sarfi moslashuviga hissa qo‘shishi mumkin, ammo muhit, yordam, xulq va davolash ham muhim. Leptin chuquri yagona belgilangan klinik sindrom emas.