Берберинді тек «табиғи метформин» деп сипаттау оның әсерін түсіндіру үшін жеткіліксіз. Бұл өсімдік алкалоиды ішек саңылауында, ішек қабырғасында және бауырда әртүрлі жағдайға тап болады; оның тасымалдануы, метаболизмі және жасушалық нысаналары бір ғана тізбекке сыймайды. Дигидроберберин (DHB) осы молекуланың тотықсызданған түрі. Оның кейбір тәжірибелерде жақсырақ өтуі ұзақ мерзімді емдеуде тиімдірек немесе қауіпсіздеу екенін автоматты түрде білдірмейді.
Тақырыпты талдағанда үш арақашықтықты сақтау қажет: ішек саңылауындағы мөлшер мен қандағы экспозиция арасындағы айырма; өлшенген жалпы концентрация мен жасушалық нысанаға қолжетімді бос зат арасындағы айырма; механизм мен адамға маңызды клиникалық нәтиже арасындағы айырма. AMPK белсенуі, LDLR мРНҚ тұрақтануы немесе PCSK9 азаюы туралы дерек осы аралықтардың бәрін бірден жаппайды. Төмендегі мақала берберин мен DHB жөніндегі бастапқы жұмыстарды осы тұрғыдан байланыстырады.
1. Екі молекула және өсімдік бастауы
Берберин қай өсімдіктерде кездеседі?
Берберин Berberis vulgaris, Berberis aristata, Mahonia туысының өсімдіктерінде, сондай-ақ Coptis chinensis, Hydrastis canadensis және Phellodendron түрлерінде кездеседі. Олар бір ғана ботаникалық тұқымдасқа жатпайды. Тарихи қолданылған тамыр, тамырсабақ немесе қабық сығындысының құрамында бербериннен басқа алкалоидтар да болуы мүмкін; тазартылған бербериннің зерттеулерін осындай қоспаның қасиетімен теңестіруге болмайды.
Өсімдік түрі, пайдаланылған бөлігі және экстракция тәсілі химиялық құрамға ықпал етеді. Сондықтан «берберині бар өсімдік» пен нақты құрамы көрсетілген препарат бірдей зерттеу нысаны емес. Бұл айырма тиімділікке де, өзара әсерлесуге де қатысты.
Өсімдіктегі биосинтез адам метаболизміне ұқсамайды
Өсімдікте берберин бензилизохинолин алкалоидтарының тармақталған жолы арқылы түзіледі. L-тирозиннен шығатын екі тармақ допамин мен 4-гидроксифенилацетальдегидті береді; норкоклауринсинтаза оларды (S)-норкоклауринге біріктіреді. Кейінгі метилдеу, гидроксилдеу және басқа реакциялар ретикуллинге жеткізеді, ал berberine bridge enzyme арқылы скоулерин қаңқасы түзіледі. Одан кейінгі реакциялар бербериннің құрылымын қалыптастырады.
Бұл сызба «адам L-DOPA-дан берберин жасайды» дегенді білдірмейді. Өсімдікке тән ферменттер мен бөлімдер қажет; бастапқы аминқышқылының ортақ болуы бүкіл жолдың адамда бар екенін дәлелдемейді. Биосинтезді фармакокинетикадан бөлек қарастыру керек.
Бербериннің заряды және тұз түрі
Берберин — төртіншілік изохинолиний катионы. Катионның формуласы C20H18NO4+, молекулалық массасы шамамен 336,36 г/моль. Тұрақты оң заряд мембранадан өтудің, тасымалдағыштармен әрекеттесудің және жасуша ішіндегі таралудың шарттарына әсер етеді; бұл қасиет молекула мүлде өтпейді деген қарапайым қорытындыға жеткіліксіз (PubChem, Berberine).
Қаптамада көрсетілген берберин хлоридінің массасында қарсы ион және кейде кристалдық су да есептеледі. Тұз массасын белсенді катион массасымен немесе басқа гидраттық күйдегі өніммен тікелей салыстыру дәл емес. Зерттеу нәтижесін түсіндіру үшін нақты химиялық түр мен талдау әдісі маңызды.
DHB: тотықсыздану және рН-қа тәуелді күй
DHB формуласы C20H19NO4, молекулалық массасы шамамен 337,37 г/моль. Бербериннің тотықсыздануы формалды түрде төмендегі жартылай реакциямен сипатталады; ол белгілі бір организмдегі барлық ферменттік сатыларды көрсетпейді:
BBR++H++2e−⇌DHB
DHB үшін «әрқашан бейтарап және толық липофильді» деген сипаттама тым қатаң. Оның үшіншілік аминінің протондалу үлесі рН-қа байланысты, ал нақты сіңуі ортаға, ерігіштікке, мембранаға және басқа процестерге тәуелді. Зарядтың өзгеруі өтуге ықпал етуі мүмкін, бірақ барлық тосқауыл мен тасымалдағышты жоймайды (PubChem, Dihydroberberine; Feng және әріптестері, 2015).
Төмен плазмалық концентрация әсердің жоқтығын дәлелдемейді
Бербериннің ауыз арқылы қабылданғаннан кейін қандағы өзгермеген зат ретінде аз анықталуы оның барлық әсері әлсіз дегенді білдірмейді. Ішекте жергілікті экспозиция жоғары болуы, қақпа венасы арқылы бауырмен алғашқы жанасу және метаболиттердің түзілуі мүмкін. Тіндік жалпы концентрацияны бос, нысанаға қолжетімді концентрациямен теңестіру де дұрыс емес.
Абсолюттік биожетімділікті есептеу үшін ауыз арқылы және көктамыр арқылы енгізілген дозалардың салыстырмалы экспозициясы қажет. Егеуқұйрықта алынған төмен пайызды адамға тікелей көшіруге болмайды. «Нашар сіңеді» деген тұжырым препараттың нақты клиникалық тиімділігін де, оны жақсартудың ең қолайлы тәсілін де жеке өзі анықтамайды.
P-gp және асқазан-ішек төзімділігі
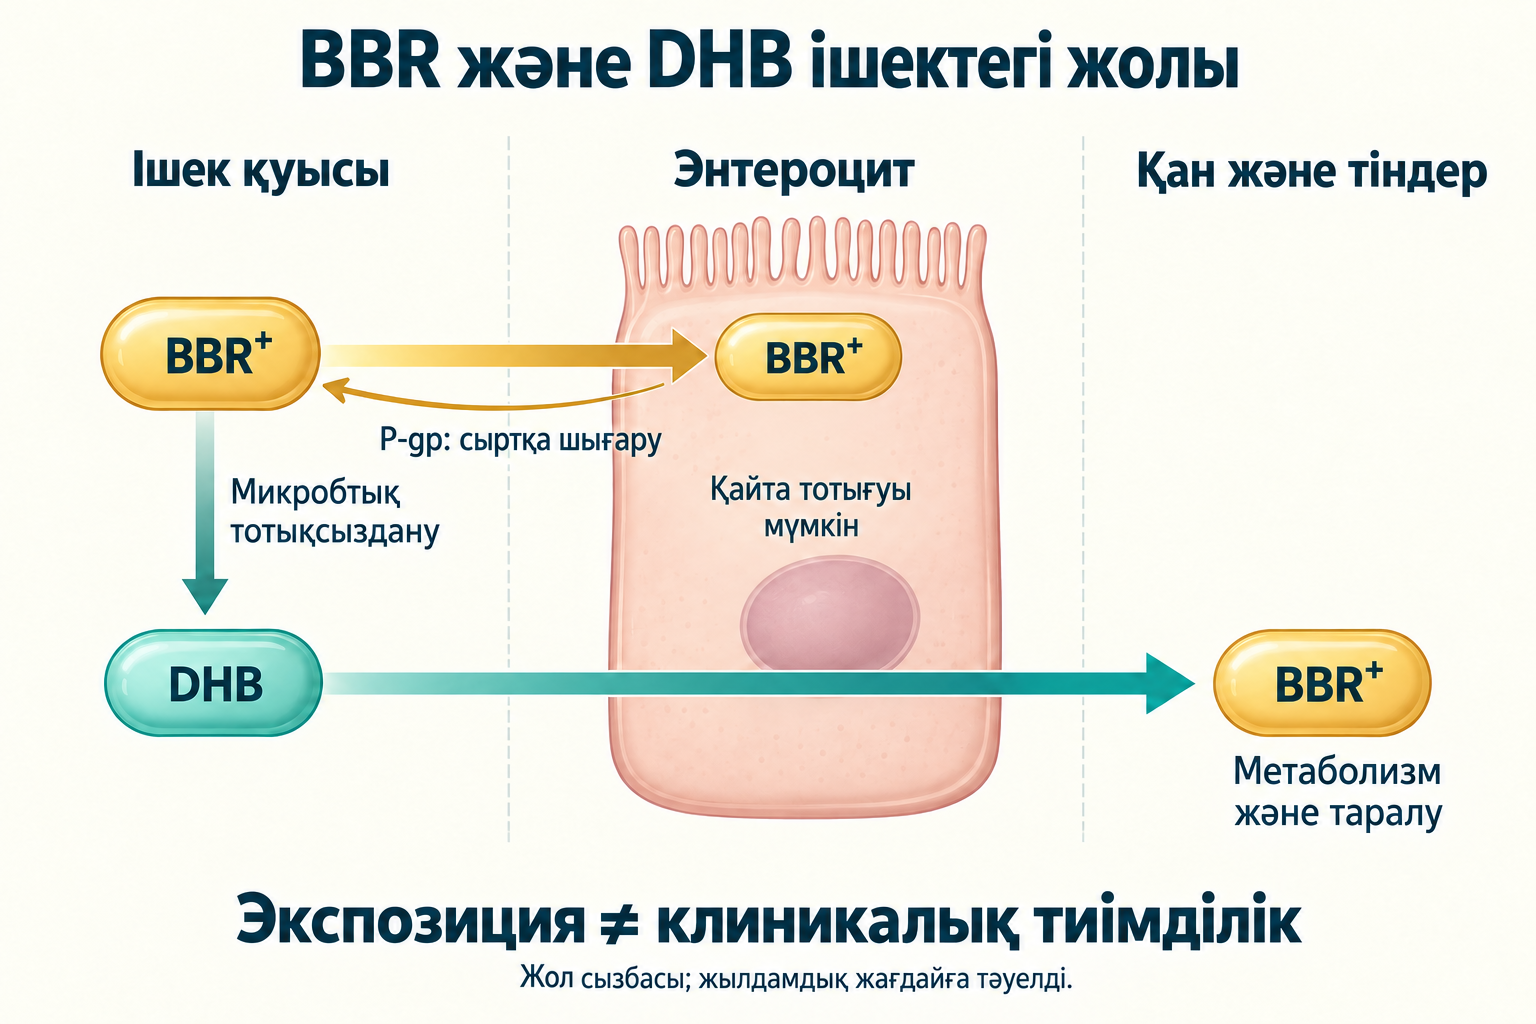
P-гликопротеин (ABCB1) АТФ энергиясын пайдаланып, кейбір субстраттарды энтероциттің апикалдық беті арқылы ішек саңылауына шығарады. Берберинге қатысты тасымал тәжірибелері осы шығару бағыты сіңуді шектеуі мүмкін екенін көрсетті. Алайда бұл жалғыз кедергі емес: ерігіштік, метаболизм және басқа тасымалдау жолдары да қатысады (Pan және әріптестері, 2002; Feng және әріптестері, 2015).
DHB-нің тәжірибеде төменірек шығару коэффициенті болуы оның ABC-тасымалдағыштардан толық тәуелсіз екенін білдірмейді. Берберинге тән іштің жайсыздығын тек осмостық әсермен түсіндіру де жеткіліксіз. DHB-нің бір шағын зерттеуде жақсы көтерілгенінен оның барлық дозада асқазан-ішек жағымсыз әсері болмайды деген қорытынды шықпайды.
2. Ішектегі тотығу-тотықсыздану циклі және DHB экспозициясы
Микробтық нитроредуктазалар
Feng және әріптестері бербериннің ішек бактериялары қатысатын тотықсыздануы DHB түзілуіне әкелетінін көрсетті. Нитроредуктаза белсенділігі бар микробтық жүйелер осы ауысуға қатыса алады; бірақ барлық штамм мен фермент бірдей емес. Бір фермент үшін көрсетілген кинетикалық параметрді бүкіл микробиотаға әмбебап шама ретінде беруге болмайды (Feng және әріптестері, 2015).
Бұл жолдың маңызы бастапқы заттың ішекте түрленіп, кейін басқа химиялық күйде тосқауылдан өту мүмкіндігімен байланысты. Микробиота құрамы, оның ферменттік белсенділігі, қоректік орта және қатар қолданылатын заттар процесті өзгертуі мүмкін. «Микробиота берберинді белсендіреді» деген сөйлем нақты шарттарды көрсетпесе, маңызды айырмашылықтарды жасырады.
Caco-2 моделіндегі өту коэффициенттері
Сол жұмыста Caco-2 жасушаларының қабаты арқылы апикалдықтан базолатералдық бағыттағы көрінерлік өту коэффициенті DHB үшін 4,51 × 10⁻⁶ см/с, берберин үшін 0,38 × 10⁻⁶ см/с болды. Қатынас шамамен 11,9; шығару коэффициенттері тиісінше 1,58 және 32,39 деп берілді. Бұл бір тәжірибелік жүйедегі нақты айырма, адамдағы сіңудің дәл осындай көбейткіші емес (Feng және әріптестері, 2015).
Caco-2 қабаты қан ағымын, ішек микробтарының толық қауымдастығын, тамақты және организмнің метаболизмін бір мезгілде қайталамайды. Сондықтан осы сандарды «DHB адамда 12 есе тиімді» деп аудару дұрыс емес. Өту коэффициенті — клиникалық нәтиженің орнына жүрмейтін модельдік көрсеткіш.
Кері тотығу міндетті түрде FMO реакциясы емес
DHB сіңгеннен кейін қайта берберинге айналуы мүмкін. Feng жұмысындағы ішек гомогенаты тәжірибелерінде тотығу қайнатудан кейін де сақталған, бұл жағдайда ферменттік емес компоненттің басымдығын қолдайды. Дерек барлық кері ауысуды бір FMO ферменті жүзеге асырады немесе белгілі бір уақыт ішінде толық аяқталады деген тұжырымға негіз болмайды.
Бауырдағы FMO3 арқылы триметиламиннің TMAO-ға тотығуы — басқа реакция және басқа субстраттық жол. Оны DHB тотығуына дәлел ретінде қосуға болмайды. Кері түрлену мүмкіндігі DHB енгізілгенде берберин мен оның метаболиттерінің экспозициясын да ескеру қажет екенін көрсетеді.
Жануардағы экспозиция және «про-зат» ұғымы
Егеуқұйрықтарға бірдей ауыздық доза берілген шағын тәжірибеде DHB-ден кейін өлшенген берберин AUC-ы шамамен 4,8 есе, Cmax-ы 3,25 есе жоғары болды; топтағы жануар саны үш еді. Бұл нәтижені барлық өнімге, дозаға, түрге және адамға таратуға болмайды. AUC пен Cmax әртүрлі ақпарат береді: біреуі уақыт бойындағы экспозицияны, екіншісі ең жоғары концентрацияны сипаттайды (Feng және әріптестері, 2015).
DHB-ні берберинге айналатын жеткізу түрі немесе про-зат ретінде талқылауға болады. Алайда «про-зат» атауы оның өзінің биологиялық белсенділігі мүлде жоқ екенін дәлелдемейді. Бастапқы молекула, қайта түзілген берберин және басқа метаболиттерді ажыратып өлшеу қажет.
Адамдағы бес қатысушылы зерттеу нені көрсетті?
Moon және әріптестерінің Nutrients журналындағы жұмысы бес дені сау ер адамда плацебоны, 500 мг берберинді, 100 мг және 200 мг DHB-ні салыстырды. Хаттамада төрт қабылдау болды: үшеуі алдыңғы күні, соңғысы сынақ тағамымен бірге. Қан алу терезесі соңғы қабылдаудан кейін екі сағатты қамтыды. Сондықтан бұл «бір капсуланың ұзақ мерзімді әсері» туралы зерттеу емес (Moon және әріптестері, 2022).
DHB жағдайларында берберин экспозициясының жоғары болуы фармакокинетикалық айырманы қолдайды. Бірақ сол тәжірибеде глюкоза мен инсулиннің жедел жауабы бойынша сенімді клиникалық артықшылық көрсетілмеді. Бес адамның қысқа бақылауы HbA1c, LDL-C, бауыр фиброзы немесе жүрек-қантамыр оқиғалары туралы қорытынды бермейді; 100 мг DHB-ні 500 мг бербериннің әмбебап емдік баламасы деп жариялауға болмайды.
Мицеллалық берберинмен салыстыру
Chang және әріптестері тоғыз дені сау қатысушыда DHB мен белгілі бір мицеллалық берберин формасының 24 сағаттық фармакокинетикасын зерттеді. Ата-аналық затпен бірге метаболиттердің айырмашылықтарын талдау экспозицияны бір ғана плазмалық санға сыйғызбауға көмектеседі. Дегенмен нақты мицеллалық өнімді салыстыру кәдімгі бербериннің барлық түрін салыстырғанмен бірдей емес (Chang және әріптестері, 2024).
Бұл жұмыс та ауруы бар адамдарда ұзақ мерзімді клиникалық басымдықты дәлелдемейді. Өнімнің технологиясы, зерттеу уақыты және өлшенген химиялық түрлер маңызды. Жалпы биожетімділік туралы жарнамалық тұжырымға көшпес бұрын салыстырғыштың қандай болғанын тексеру қажет.
Фармакокинетикалық нәтижені дұрыс оқу
Дерек
Нақты байқау
Одан шықпайтын қорытынды
Caco-2, Feng 2015
DHB өту коэффициенті шамамен 11,9 есе жоғары
Адамдағы тиімділік 11,9 есе жоғары
Caco-2 шығару
DHB 1,58; берберин 32,39
DHB барлық шығару тасымалдағышын айналып өтеді
Егеуқұйрық, n = 3
Берберин AUC 4,8 есе; Cmax 3,25 есе
Барлық адам мен өнімдегі тұрақты көбейткіш
Moon, бес дені сау ер адам
Төрт қабылдау, екі сағаттық терезе
Диабет пен дислипидемияны емдеу дозаларының теңдігі
Moon глюкоза/инсулин
Жедел артықшылық сенімді көрсетілмеді
Ұзақ мерзімді пайда дәлелденді немесе жоққа шығарылды
Chang, тоғыз қатысушы
Нақты DHB және мицеллалық форма, метаболиттік PK
Клиникалық нәтижелер мен созылмалы қауіпсіздіктегі басымдық
3. Жасушаға жету, митохондрия және AMPK
OCT және MATE: кіргізу мен шығарудың бағыттары
Органикалық катион тасымалдағыштары OCT және MATE бербериннің таралуына немесе басқа субстраттармен өзара әсеріне қатыса алады. Shi және әріптестерінің 2018 жылғы жұмысында егеуқұйрықтың бүйректік OCT2–MATE1 бағыты қарастырылды. 2019 жылғы жұмысында бербериннің OCT1/OCT2/MATE1 арқылы метформин тасымалына ықпалы модельдерде зерттелді. Бүйректен шығарылу, бауырға ену және ішектен өту — бір бағыт емес.
Осы деректерді «адам бауырына барлық берберинді OCT1 жеткізеді» немесе «DHB барлық OCT өзара әсерінен бос» дегенге айналдыруға болмайды. Тасымалдағыштың экспрессиясы, мембранадағы орны, субстрат концентрациясы және организм түрі нәтижеге ықпал етеді. Метформинмен модельдік бәсекелестік клиникалық дозаны өзгерту туралы нұсқау емес.
Мембраналық потенциал және жиналу шектері
Теріс митохондриялық матрикс потенциалы еркін өтетін оң зарядты заттың тепе-тең таралуына ықпал етуі мүмкін. Идеал бірвалентті катион үшін Нернст қатынасы келесідей жазылады; мұнда Δψ — матрикс потенциалы минус цитозоль потенциалы:
CcytosolCmatrix=exp(−RTzFΔψ)
Бұл формула бербериннің әр адамда міндетті түрде мың есе жиналатынын дәлелдемейді. Еркін өту, тепе-теңдік және бос концентрация шарттары орындалуы керек; байланысу, тасымал, метаболизм және потенциалдың өзгеруі нақты таралуды өзгертеді. Тіндегі жалпы зат мөлшерін осы тепе-теңдік қатынасына тікелей қоюға болмайды.
I кешеннің тежелуі және тыныс алудың ажырауы
Turner және әріптестері бербериннің митохондриялық I кешен қызметін тежеуі энергетикалық күй мен AMPK сигналын өзгерте алатынын көрсетті. I кешеннің тотығу-тотықсыздану бөлігі NADH электрондарын убихинонға берумен байланысты; протондардың мембрана арқылы айдалуы бөлек байланысқан процесс:
NADH+H++Q⟶NAD++QH2
Эксперименттік тежелу бербериннің атомдық байланысу қалтасы толық анықталған дегенді білдірмейді. Сонымен бірге I кешенді тежеу мен протондық градиентті ажырату бір механизм емес. UCP және митохондриялық ажырау туралы талқылау осы айырманы ашады: тыныс алу тізбегінің бір буынын шектеу басқа буындар жұмыс істегенімен, барлық жағдайда қауіпсіз немесе пайдалы болмайды (Turner және әріптестері, 2008).
Аденилаткиназа және энергетикалық белгі
АТФ өндіру мен жұмсау арақатынасы өзгергенде ADP және AMP деңгейлері де өзгеруі мүмкін. Аденилаткиназа келесі тепе-теңдік арқылы AMP-тің салыстырмалы сезімталдығына үлес қосады:
2ADP⇌ATP+AMP
Осы байланыстан «АТФ міндетті түрде 5% төмендесе, AMP 500% өседі» деген әмбебап ереже шықпайды. Бастапқы мөлшерлер, бөлімдер және энергияның буферлік жүйелері маңызды. Креатинкиназа жүйесі АТФ алмасуын басқа жағынан тұрақтандырады; энергетикалық күйзелісті пайдалы бейімделумен теңестіруге болмайды.
AMPK құрылысы және белсенуі
AMPK α каталитикалық, β және γ реттеуші суббірліктерден тұрады. γ суббірлігіндегі төрт CBS мотивін төрт бірдей тәуелсіз AMP орны деп түсіндіру қате. AMP байланысуы аллостериялық белсенділікке және фосфорлануды сақтауға ықпал етеді; ADP әсері AMP-пен толық бірдей емес. α суббірліктегі Thr172 фосфорлануы негізгі реттеуші саты болып табылады (Hardie және әріптестері, 2012).
LKB1–STRAD–MO25 кешені, CaMKK2 және жасушалық контекстке тәуелді басқа жолдар осы күйге әсер етеді. Берберинмен AMPK белсенуін көрсеткен жасушалық және жануарлық жұмыстар механизмді қолдайды, бірақ адамның барлық тінінде бірдей жауапты дәлелдемейді. Lee, Brusq және Turner жұмыстары осы айырмашылықты сақтау арқылы оқылуы керек.
AMPK-ке тәуелді ACC фосфорлануы оның белсенділігін төмендетуі мүмкін; нақты қалдықтың нөмірі изоформа мен организм түріне байланысты. Малонил-КоА азайса, CPT1-ге түсетін тежегіш ықпал әлсіреуі ықтимал. Ұзын тізбекті май қышқылының ацил тобы CPT1, карнитин–ацилкарнитин транслоказа және CPT2 қатысатын жүйе арқылы митохондрияға өтеді; CPT1 және май қышқылдарының тотығуы осы тасымалды бөлек түсіндіреді.
Митохондрияға кіру толық тотығуға тең емес. Электрон тасымалдау тізбегі шектелсе, «CPT1 босады, демек барлық май жанады» деген қорытынды дұрыс болмайды. Brusq және әріптестерінің нәтижелері липид синтезі мен энергетикалық сигналды байланыстырады, бірақ жеке молекулалық көрсеткіш клиникалық май жоғалтуды есептемейді.
SREBP-1c және липогенез
SREBP-1c эндоплазмалық торда SCAP-пен реттеледі, кейін Гольджи аппаратына өтіп, протеолиз арқылы ядролық белсенді түріне айналады. AMPK-пен байланысты сигналдар осы өңдеуге немесе липогенездік бағдарламаға әсер етуі мүмкін. FASN және SCD1 сияқты гендер маңызды, бірақ оларды барлық жасушада толық өшеді деп сипаттауға болмайды.
Бауырдағы липид теңгерімі синтезден ғана тұрмайды. Май қышқылдарының түсуі, тотығуы, VLDL құрамында шығарылуы, инсулин және ChREBP сигналдары да қатысады. Бір жолдың бәсеңдеуі бауыр майының өзгеруін түсіндіруге үлес қоса алады, бірақ барлық клиникалық әсердің жалғыз себебі емес.
GLUT4, Rab және инсулин сигналы
GLUT4 везикулаларының жасуша бетіне қозғалысында TBC1D1 және TBC1D4/AS160 сияқты Rab-GAP ақуыздары қатысады. GAP белсенділігі Rab-тың GTP гидролизіне ықпал етеді; оны «GTPазаны белсендіріп, GTP күйін сақтайды» деп түсіндіру дұрыс емес. Фосфорлану мен 14-3-3 байланысуы осы реттеуге тінге тәуелді ықпал етеді.
AMPK-пен және PI3K–Akt арқылы инсулинмен берілетін сигналдар кейбір деңгейде түйісуі мүмкін, бірақ бірін екіншісінің толық орнына қоюға болмайды. p38 немесе жасушалық глюкоза қабылдау көрсеткіштерінің өзгеруі бербериннің адамда инсулинді алмастыратынын дәлелдемейді. Бұлшықет, май тіні және бауырдың міндеттері де бірдей емес.
CRTC2 және глюконеогенез
CRTC2 ескі әдебиетте TORC2 деп аталуы мүмкін; ол mTORC2 кешенімен бірдей емес. CREB коактиваторының фосфорлануы мен 14-3-3 арқылы ұсталып қалуы ядролық қызметке әсер етеді. SIK және AMPK туыстас киназалар, гормондық сигналдар мен қоректену күйі осы реттеуге қатысады (Koo және әріптестері, 2005).
PCK1 және G6PC экспрессиясының өзгеруін бір ғана «AMPK қосылды — бауыр глюкоза шығармайды» тізбегіне қысқартуға болмайды. Глюконеогенездің субстраттары, ферменттердің белсенділігі және транскрипциялық бағдарлама бірге қарастырылады. Клеткалық механизмді қандағы глюкозаның ұзақ мерзімді бақылауымен байланыстыру үшін клиникалық зерттеу керек.
NAD+, SIRT1 және жағдайға тәуелді жауап
Cantó және әріптестері AMPK, NAD+ және SIRT1 арасындағы байланысты белгілі бір эксперименттік жағдайда көрсетті. Бұл байланыс энергетикалық күй мен ацетилденудің реттелуін біріктіреді, бірақ әр тінде бірдей бағытта жүретін әмбебап ауысқыш емес. FOXO немесе PGC-1α белсенділігі ашығу кезінде глюконеогенездік бағдарламаны да қолдауы мүмкін (Cantó және әріптестері, 2009).
NAD+ прекурсорлары NR және NMN туралы материал осы метаболиттік желіні кеңейтеді. Механизмдердің қиылысуы берберинді осы заттармен қосу пайдалы немесе қауіпсіз екеніне жеке дәлел болмайды. Нысанаға әсер, жүйелік физиология және ем нәтижесі бөлек бағаланады.
4. LDLR, PCSK9 және холестериннің шығарылуы
LDLR мРНҚ тұрақтануы
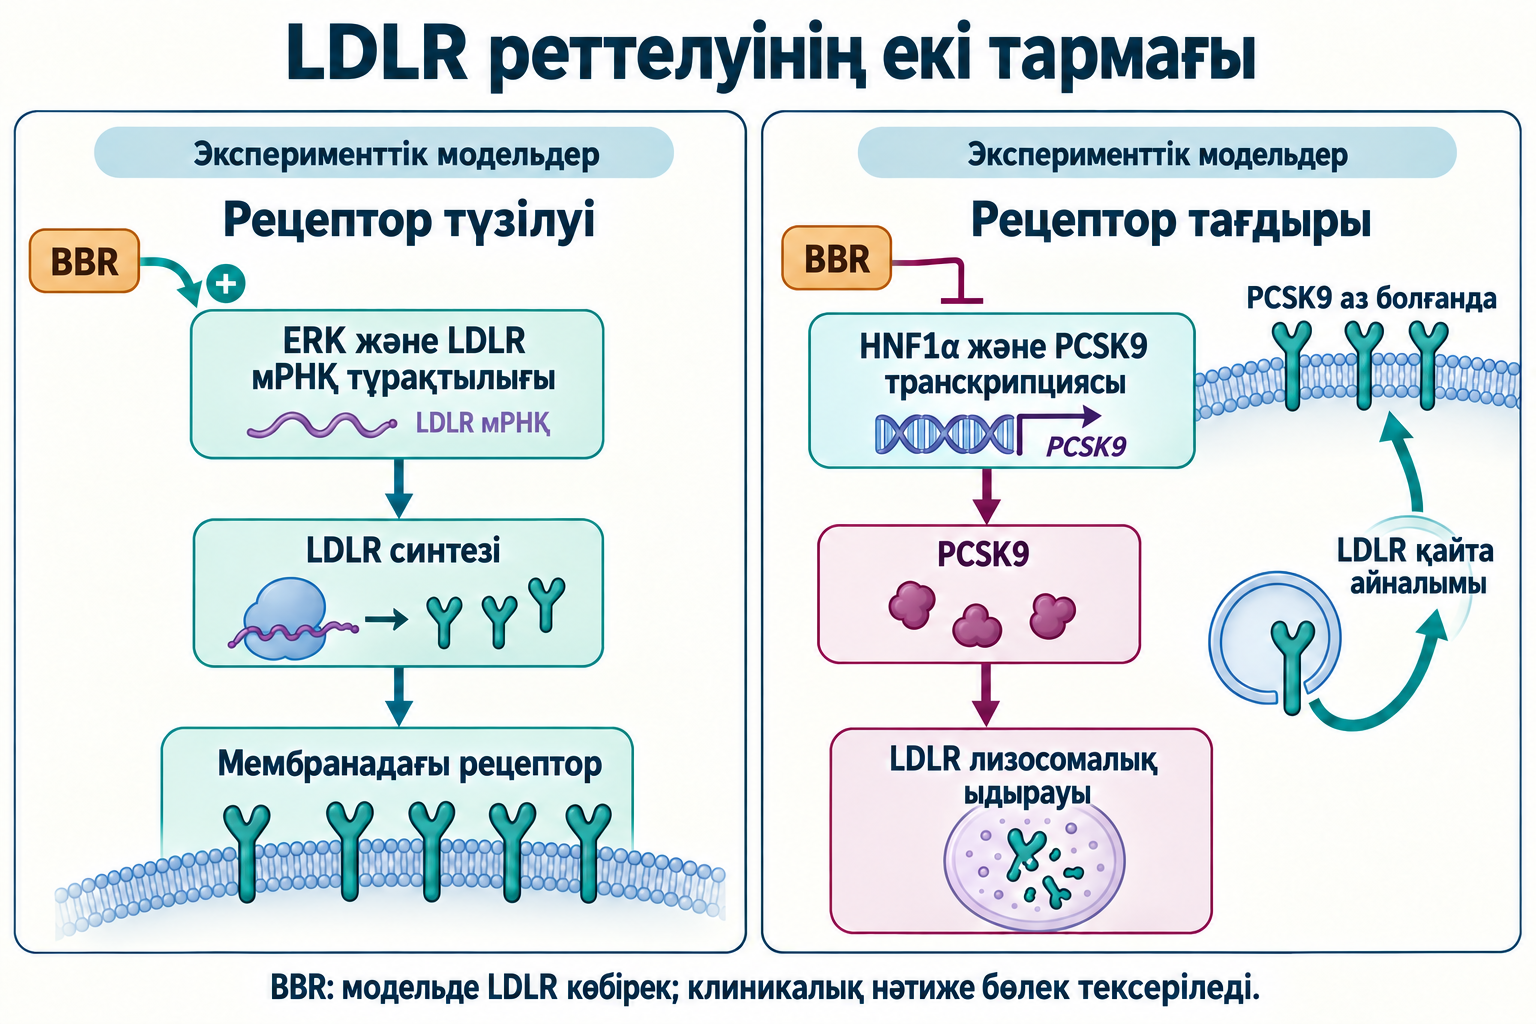
Kong және әріптестері бербериннің LDL рецепторы экспрессиясын арттыруына LDLR мРНҚ тұрақтануы қатысатынын сипаттады. Abidi және әріптестері ERK сигналы мен мРНҚ-ның 3′-трансляцияланбайтын аймағын зерттеді. Бұл механизм статиндердің HMG-CoA редуктазаны тежеуінен және SREBP-2 арқылы транскрипциялық жауаптан өзгеше (Kong және әріптестері, 2004; Abidi және әріптестері, 2005).
Механизмнің өзгешелігі клиникалық тиімділіктің теңдігін немесе басымдығын білдірмейді. мРНҚ мөлшері, ақуыз синтезі, жасуша бетіне жеткізілуі және нақты LDL ағыны бір-бірімен байланысты, бірақ бөлек өлшемдер. Рецептордың функционалдық күйін тек транскрипт санынан толық анықтау мүмкін емес.
РНҚ-мен байланысатын ақуыздар
Li және әріптестерінің РНҚ жөніндегі жұмысында hnRNP D, hnRNP I және KSRP сияқты ақуыздардың LDLR мРНҚ ыдырауына қатысуы қарастырылды. Бербериннің олардың мРНҚ-мен әрекеттесуін өзгертуі тұрақтануға ықпал етуі мүмкін. Сондықтан бұл ақуыздармен байланыс күшеюі мРНҚ-ны міндетті түрде қорғайды деп жазу бағытты шатастырады (Li және әріптестері, 2009).
Тұрақтанған мРНҚ синтезге қолжетімді уақытты ұзартады, бірақ оның әр қосымша молекуласы белсенді беткейлік рецепторға айналмайды. Трансляция, тасымал және рецептордың ыдырауы да маңызды. Осы деңгейлерді ажырату екі бауырлық механизмді біріктіріп түсіндіруге көмектеседі.
PCSK9 рецептордың тағдырын қалай өзгертеді?
Секрецияланған PCSK9 LDLR-дің EGF-A аймағымен байланысып, эндоцитоздан кейін рецептордың лизосомалық ыдырауға бағытталуына ықпал етеді. PCSK9-дың өздігінен протеолизі оның жетілуі мен секрециясына қатысты; ол LDLR-ді тікелей кесетін немесе оған ковалентті «желім» жасайтын реакция емес. Қалыпты қайта айналым кезінде LDLR жасуша бетіне оралады, ал PCSK9 бұл мүмкіндікті азайтады (Cunningham және әріптестері, 2007).
Функционалдық LDLR генетикалық ақаудан қатты шектелсе, оның мөлшерін реттейтін жолдан күтілетін жауап та өзгеше болуы мүмкін. Сондықтан барлық дислипидемияны бір рецепторлық схема арқылы түсіндіруге болмайды. Механизм нақты биологиялық контекстке сүйенеді.
HNF1α–PCSK9 осі
Li және әріптестері PCSK9 промоторында HNF1α-ның маңызды рөлін және оның SREBP-2-пен байланысқан реттелуін көрсетті. Бербериннің PCSK9 экспрессиясына әсері осы транскрипциялық деңгеймен байланысты болуы мүмкін. Бұл дерек HepG2 тәрізді эксперименттік жүйелерде алынған; адамның қанындағы PCSK9 барлық дозада бірдей азаяды дегенді білдірмейді (Li және әріптестері, 2009).
Dong және әріптестерінің кейінгі жұмысы бербериннің HNF1α ақуызының протеасомалық ыдырауын күшейтуі мүмкін екенін көрсетті. Ақуыз деңгейінің азаюын оның мРНҚ-сы міндетті түрде сол шамада төмендеуімен теңестіруге болмайды. HNF1α көптеген генді реттейді, сондықтан бір қолайлы нысананың өзгеруі бүкіл жолды шартсыз қауіпсіз етпейді (Dong және әріптестері, 2015).
Эндоцитоз, LDL-C және ApoB
LDLR ApoB100 немесе ApoE бар бөлшектердің танылуына қатысады. Қышқыл эндосомада жүк пен рецептор ажырап, рецептор қайта айналымға түсуі мүмкін; жүк жасуша ішінде өңделеді. PCSK9-ға тәуелді ыдырау осы қайта пайдалануды шектейді. Схема рецептордың барлық лигандтары мен липопротеин жолдарын толық қамтымайды.
LDL-C бөлшектер ішіндегі холестерин массасын, ал ApoB атерогендік бөлшектердің санын бағалауға жақынырақ көрсеткіш береді. Екеуі әрқашан бірдей өзгермейді. LDL-C төмендегені барлық қалдық бөлшектердің толық тазаланғанын немесе белгілі бір жасушалық механизмнің адамда дәл іске қосылғанын жеке өзі дәлелдемейді.
Статиндермен және басқа дәрілермен салыстыру
Статиндер SREBP-2 жауабы арқылы LDLR-мен бірге PCSK9 экспрессиясын да арттыра алады. PCSK9-дың бұл жауабы статиндердің пайдасын жоймайды және барлық адамда міндетті «әсерден қашу» дамиды дегенді білдірмейді. Cameron және әріптестерінің бербериннің HepG2 жасушаларында PCSK9 экспрессиясын төмендетуі туралы дерегі ықтимал механизмді көрсетеді, клиникалық алмастыруды емес (Cameron және әріптестері, 2008).
Эзетимиб NPC1L1 арқылы холестерин сіңуін шектейді, ал PCSK9-ға қарсы антиденелер рецепторды сақтаудың басқа әдісін қолданады. IMPROVE-IT және FOURIER сияқты зерттеулерде клиникалық оқиғалар бағаланған; сол нәтиже берберинге механизм ұқсастығы арқылы берілмейді. Қосып қолданудың мүмкіндігі комбинацияның тиімділігі мен қауіпсіздігін жеке тексеруді талап етеді; миопатия қаупі автоматты түрде жойылмайды (Cannon және әріптестері, 2015; Sabatine және әріптестері, 2017).
5. Микробиота, тосқауыл және TMAO
Қауымдастықтың өзгеруі бір бағытты емес
Бербериннің микробтарға тікелей әсері және ішек ортасының өзгеруі қауымдастық құрамын өзгерте алады. Zhang және әріптестерінің егеуқұйрықтағы жұмысы микробиота мен метаболизмнің байланысты өзгерістерін көрсетті. Бір таксонның салыстырмалы үлесі артуы оның абсолюттік саны міндетті түрде көбейгенін білдірмейді (Zhang және әріптестері, 2015).
Akkermansia, Bifidobacterium немесе Faecalibacterium атауын өнімнің әмбебап «пребиотик» әсерінің кепіліне айналдыруға болмайды. Бастапқы микробиота, тамақтану, доза және модель маңызды. DHB ішекте өзгермеген берберинге қарағанда басқа экспозиция қалыптастырса, микробтық әсердің дәл сол күйде сақталатынын бөлек тексеру керек.
Қысқа тізбекті май қышқылдары
Ацетат, пропионат және бутират микробтық ашу өнімдері болып табылады. Олардың нәжістегі концентрациясы өндіріс жылдамдығын тікелей өлшемейді: сіңу, ішек транзиті және пайдаланылу да ықпал етеді. Бутират колоноцитке энергия беруі және белгілі жағдайда HDAC белсенділігіне әсер етуі мүмкін, бірақ бір тұрақты пайызбен барлық адамның метаболизмін сипаттау дұрыс емес.
FFAR2 Gq және Gi жолдарымен, ал FFAR3 көбіне Gi/o жолдарымен байланысты. Екеуін де міндетті PLC–IP3–Ca2+ тізбегі арқылы жұмыс істейді деп көрсету қате. GLP-1 немесе PYY секрециясындағы ықтимал өзгеріс эндогендік реттелуге қатысты; оны GLP-1 рецептор агонистерінің дәрілік әсерімен теңестіруге болмайды.
Тығыз түйісулер және тосқауыл қызметі
Клаудиндер паражасушалық өткізудің таңдамалылығына, окклюдин түйісудің ұйымдасуына, ZO-1 ақуыздары актин жүйесімен байланысқа қатысады. Белгілі бір ақуыздың экспрессиясы, электрлік кедергі (TEER) және нақты молекуланың қабат арқылы өтуі әртүрлі көрсеткіштер. Олардың біреуінің жақсаруы адамның ішек тосқауылы толық қалпына келді дегенді білдірмейді.
Жасушалық және жануарлық модельдер тосқауыл механизмдерін тексеруге пайдалы. Бірақ барлық инсулинге төзімділікті бір ғана «ішектің ағып кетуімен» түсіндіру жеткіліксіз. Клиникалық контекст пен қолданылған маркердің шегі сақталуы тиіс.
LPS және қабыну сигналдары
Липополисахарид CD14 және MD-2 қатысуымен TLR4 сигналын іске қосып, MyD88, IKK және NF-κB жолдарына ықпал ете алады. Cani және әріптестерінің жұмысы жануарларда метаболикалық эндотоксемияның себептік мүмкіндігін зерттеді. Бұл адамдағы барлық инсулинге төзімділік бір ғана LPS жолынан басталады деген дәлел емес (Cani және әріптестері, 2007).
Қандағы LPS-ті өлшеудің техникалық шектері бар; бір қабыну маркерінің азаюы бүкіл сигналдың толық өшкенін көрсетпейді. Бербериннің иммундық сигналдарға әсерін биомаркер, модельдік себептілік және адамдағы клиникалық нәтиже деңгейлерінде ажырату қажет.
TMA түзілуі мен бауырлық TMAO
Холиннен TMA түзілуіне CutC глицил-радикалдық ферменті және оны белсендіретін CutD жүйесі қатысады. CutD S-аденозилметионинге тәуелді радикалдық белсендірумен байланысты; холин реакциясында TMA-мен бірге ацетальдегид түзіледі. L-карнитиннен TMA түзілуінің басқа жолдары бар, сондықтан барлық субстратты CutC-ге жинақтау дұрыс емес (Wang және әріптестері, 2011; Koeth және әріптестері, 2013).
Бауырдағы FMO3 TMA-ны TMAO-ға тотықтыра алады. TMAO деңгейіне тағам, микробтық жолдар және бүйректен шығарылу әсер етеді. Оның клиникалық байланыстарын әр жағдайда бірдей уытты әсер деп түсіндіру немесе осы жолды DHB тотығуымен шатастыруға болмайды.
«Витаминге ұқсас» гипотезаның шегі
Ma және әріптестерінің 2022 жылғы жұмысы бербериннің микробтық фермент жүйелеріне қатысуын және атеросклерозбен байланысты әсерлерін зерттеді. «Витаминге ұқсас» сипаттама осы тәжірибелік гипотезаға қатысты; бербериннің адамға қажетті витамин екені дәлелденген жоқ. Белгілі бір ферментпен ықтимал әрекеттесу барлық TMA түзетін бактериялардың міндетті тежелуімен тең емес (Ma және әріптестері, 2022).
Жұмыстағы адамдық бөлік 21 қатысушыны төрт ай бақылап, ультрадыбыстық бляшка ұпайын қарастырды. Ол плацебомен рандомизацияланған оқиғалық зерттеу емес. Ұпай өзгерісін бляшка ауданының бірдей пайыздық кемуіне немесе инфаркттың азаюына аудару дұрыс емес.
6. Адамдағы метаболикалық зерттеулер
Диабеттегі алғашқы салыстырулар
Yin және әріптестері жаңадан анықталған 2-типті диабеті бар 36 қатысушыны берберин мен метформинге рандомизациялап, үш ай бақылаған; бөлек бөлімде бақылауы нашар 48 адамда қосымша ем қарастырылған. Алғашқы берберин тобында HbA1c шамамен 9,5%-дан 7,5%-ға түскен. Бұл нақты бастапқы жағдайдағы нәтиже, барлық пайдаланушыда екі пайыздық тармаққа төмендеу кепілі емес (Yin және әріптестері, 2008).
Шағын жұмыс ресми түрде алдын ала жоспарланған кем түспеушілік сынағының орнына жүрмейді. Талдауға кірген берберин алған қатысушылардың 20-сында, шамамен 34,5%-ында асқазан-ішек жағымсыз белгілері болған; бұл санды бәрі емді тоқтатты деп оқуға болмайды. Қысқа бақылауда ауыр зақым байқалмауы өмір бойғы қауіпсіздікті дәлелдемейді.
Плацебо және инсулин сезімталдығын өлшеу
Zhang және әріптестері диабет пен дислипидемиясы бар 116 қатысушыда үш айлық плацебо-бақыланатын зерттеу жүргізді. Глюкоза мен липид көрсеткіштеріне қоса, гиперинсулинемиялық эугликемиялық clamp арқылы глюкозаны пайдалану бағаланған. Бұл нақты физиологиялық өлшем инсулин сезімталдығын жай бір ашқарын маркерінен басқа тәсілмен қарастырады (Zhang және әріптестері, 2008).
Алайда зерттеу ұзақтығы мен көлемі сирек қауіптерді немесе жүрек-қантамыр оқиғаларын бағалауға жеткіліксіз. Берберин туралы деректі DHB-ге тікелей көшіру де негізсіз. Әр өнім мен популяцияның клиникалық дәлелі жеке қажет.
Мета-талдауларды түсіндіру
Dong және Lan мета-талдаулары гликемия мен липидтердегі өзгерістерді жинақтады. Бірақ бастапқы зерттеулердегі соқырлау, салыстырғыштар, көлемдер және сапа біркелкі болмаған; жарияланымдық ығысудың ықтималдығы да бар. Жинақталған әсер бағасы осы шектеулерді жоймайды (Dong және әріптестері, 2012; Lan және әріптестері, 2015).
Берберинге қоса қызыл ашытқы күріші немесе басқа белсенді заттар кіретін қоспаның нәтижесін түгел берберинге телуге болмайды. Бірнеше липидтік немесе гликемиялық маркердегі оң бағыт клиникалық оқиғаларға дәлелді алмастырмайды. Мета-талдаудың қандай препарат пен соңғы нүктені біріктіргенін тексеру керек.
Бауыр майы: салыстырмалы азаю және гистология
Yan және әріптестерінің 184 қатысушылы ашық рандомизацияланған зерттеуінде 16 апта бойы өмір салтын өзгерту, оған пиоглитазон немесе берберин қосу салыстырылған. Бауыр майы протондық магниттік-резонанстық спектроскопиямен (1H-MRS) өлшенген. Берберин қосылған топтағы салыстырмалы азаю шамамен 52,7%, тек өмір салты тобында 36,4% болған (Yan және әріптестері, 2015).
Бұлар абсолюттік пайыздық тармақтар емес және MRI-PDFF көрсеткішін сөзсіз білдірмейді. Май мөлшерінің төмендеуі MASH гистологиялық жойылуына немесе фиброздың кері дамуына тең емес. ALT өзгеруі де бауыр тінінің барлық патологиялық процесін анықтамайды.
Салмақ пен қабыну маркерлері
Берберинмен салмақ азаюы туралы әдебиет біркелкі емес. Популяциялар, препараттар, ұзақтық және қатар өзгерген өмір салты әртүрлі; NCCIH дерек сапасының шектеулерін атап көрсетеді. Механизмнен нақты килограмм немесе висцералдық майдың тұрақты пайызын есептеп беру негізсіз.
hs-CRP тәрізді маркердің төмендеуі қызықты болуы мүмкін, бірақ ол қандай жол іске қосылғанын жеке өзі анықтамайды. Салмақ, гликемия және қабынудың қатар өзгеруі ықтимал, алайда себептік үлестерін ажырату үшін жақсы жоспарланған зерттеу қажет. DHB туралы қысқа PK дерегі бұл сұраққа жауап бермейді.
Нәтиже деңгейлері
Сұрақ
Қолда бар дерек деңгейі
Ашық қалған мәселе
Берберин HbA1c-ті өзгерте ме?
Шағын адамдық зерттеулер мен мета-талдаулар
Барлық популяциядағы мөлшер және ұзақ мерзімді клиникалық нәтиже
DHB гликемияда басым ба?
Дені сау адамдардағы қысқа PK
Диабеттегі ұзақ тікелей салыстыру
LDL-C төмендей ме?
Бербериннің клиникалық маркерлері және жасушалық жолдар
Жүрек-қантамыр оқиғалары және DHB басымдығы
Бауыр майы азая ма?
16 апталық 1H-MRS жұмысы
MASH гистологиясы мен фиброз
Бляшкаға ықпал бар ма?
Жануарлық тәжірибе және шағын бақылау
Рандомизацияланған клиникалық оқиғалық дәлел
Салмақ тұрақты төмендей ме?
Әртекті, шектеулі зерттеулер
Ұзақ мерзімді әсер мен DHB-ге тән дерек
7. Метаболиттер, өзара әсер және қауіпсіздік
Ата-аналық зат пен метаболиттер
Берберин деметилдену және метилендиокси тобының өзгеруі арқылы берберрубин, талифендин, деметиленберберин және ятрорризин сияқты метаболиттерге айналуы мүмкін. UGT және SULT жүйелері кейін конъюгацияланған түрлердің түзілуіне қатысады. Нақты пропорциялар организмге, өнімге және өлшеу әдісіне тәуелді.
Еркін ата-аналық затты, жеке метаболитті және гидролизден кейін есептелген жалпы мөлшерді бір сан ретінде салыстыру қате. Chang жұмысы осы метаболиттік суреттің маңызын көрсетеді. Бір PK қисығы барлық белсенді химиялық түрдің үлесін толық сипаттамайды.
CYP бойынша адамдық дерек
Guo және әріптестері дені сау адамдарда берберинді қайталап қабылдағаннан кейін ферменттік зондтарды қолданып, CYP2D6, CYP2C9 және CYP3A4 белсенділігінің тежелу белгілерін көрсетті. Бұл адамдардағы өзара әсерлесуге назар аударуға негіз береді. Бірақ барлық CYP немесе барлық препарат дәл бір дәрежеде өзгереді дегенді білдірмейді (Guo және әріптестері, 2012).
DHB-ден берберин экспозициясы артса, өзара әсер қаупінің автоматты түрде азаятынын күту қисынсыз. DHB формасының өзіндік зерттеуі қажет. Доза, уақыт және қатар қолданылатын препараттардың терапиялық аралығы маңызды.
Циклоспорин және тасымалдағыштар
NCCIH циклоспоринмен өзара әсер мүмкіндігін атап көрсетеді. Тар терапиялық аралықтағы препараттар үшін концентрацияның өзгеруі клиникалық маңызды болуы мүмкін. Бұл деректі барлық иммуносупрессантта бірдей әсер бар деп жариялауға болмайды, бірақ нақты дәрілерді жеке бағалау қажеттігін көрсетеді.
Варфарин немесе тікелей ауыздық антикоагулянттар туралы ферменттік болжам міндетті қан кету дәлелі емес. Метформиннің OCT/MATE арқылы тасымалына тәжірибелік ықпал да адамдағы дозаны өз бетінше өзгертуді негіздемейді. Механизмдік ықтималдық пен өлшенген клиникалық өзара әсерді бөлек көрсету керек.
Жоғары экспозицияның екі жағы
Жоғары биожетімділік төменірек енгізілген мөлшерден белгілі бір экспозиция алуға мүмкіндік беруі мүмкін. Бірақ сол экспозиция нысанадан тыс әсерді немесе жүйелік өзара әсерді де күшейте алады. «Табиғи», «жақсы сіңеді» және «аз мөлшерде қажет» деген сөздер қауіпсіздік көрсеткіштері емес.
Бес не тоғыз дені сау адамның қысқа бақылауы сирек немесе кеш пайда болатын әсерді анықтауға әлсіз. Созылмалы аурулары бар, бірнеше дәрі қабылдайтын адамдар басқа популяция. DHB-нің жағымсыз әсері жоқ деген кең тұжырым дәлел ауқымынан шығып кетеді.
Жүктілік, емізу және орган қызметі
NCCIH берберинді жүктілік пен емізу кезінде қолданбау және нәрестелерге бермеу туралы ескертеді; нәрестедегі билирубинге қатысты қауіп маңызды себептердің бірі. Бұл ескертуді берберин барлық жағдайда дәлелденген тератоген деген басқа тұжырымға айналдыруға болмайды. DHB бойынша жеткілікті деректің болмауы оның қауіпсіз екеніне дәлел емес.
Бауыр немесе бүйрек қызметі бұзылғандағы қауіп нақты өнімге және басқа дәрілерге тәуелді. Дерек жоқ кезде әмбебап eGFR немесе Child–Pugh шегін ойдан шығарып, одан жоғарының бәрі қауіпсіз деп жариялау дұрыс емес. Бағалау клиникалық жағдайға сай жүргізіледі.
Бақылау соңғы нүктеге сәйкес болуы тиіс
HbA1c бірнеше айдағы гликемиялық күйді сипаттайды; екі сағаттық концентрация қисығы оны алмастырмайды. LDL-C мен ApoB бір сұраққа әртүрлі қырынан жауап береді, ал ALT бауыр фиброзының өлшемі емес. Зерттеу мен клиникалық бақылауда таңдалған көрсеткіш нақты мақсатқа сәйкес болуы керек.
Осы мақаладан барлық адамға бірдей қабылдау немесе зертханалық бақылау кестесі шықпайды. Дәріні берберинмен немесе DHB-мен алмастыру, бірнеше затты біріктіру және дозаны өзгерту үшін жеке клиникалық негіз керек. Механизм туралы білім шешімнің дәлелін күшейте алады, бірақ рецепт орнына жүрмейді.
8. Біріктірілген түсінік және келесі зерттеулер
Үш бөлім және екі бауырлық жол
Бербериннің әсерін ішек саңылауындағы микробтық және жергілікті процестер, ішек қабырғасы мен тасымал, жүйелік және бауырлық экспозиция арқылы қарастыру пайдалы. DHB осы бөлімдер арасындағы химиялық ауысуға қатысады. Бұл әр бөлімде бірдей әсер болады немесе жоғары плазмалық мөлшер барлық жергілікті пайданың өсуін білдіреді деген модель емес.
Бауырда энергетикалық–AMPK жолы мен LDLR–PCSK9 реттелуі бір-бірімен қиылысуы мүмкін, бірақ жеке дәлелі бар әртүрлі механизмдер. LDL-C төмендеуі AMPK белсенгенін, ал HbA1c өзгеруі PCSK9 азайғанын дәлелдемейді. Жасушалық тізбек пен клиникалық нәтиже арасында өлшенуі тиіс аралық сатылар бар.
Салыстыруға болатын және болмайтын дәлел
Зат немесе топ
Негізгі талқыланатын жол
Дәлелді көшіру шегі
Берберин
Ішек, энергетикалық сигнал, LDLR/PCSK9 модельдері
Биомаркер дерегі клиникалық оқиғаларды автоматты дәлелдемейді
DHB
Тотықсызданған түр, тасымал және қайта тотығу
Шағын PK зерттеуі клиникалық басымдық емес
Статиндер
HMG-CoA редуктаза және рецепторлық жауап
Бербериннің өзгеше механизмі статинді алмастыруға жеткіліксіз
HNF1α-ға модельдік әсер сол клиникалық дәлелмен тең емес
DHB үшін қандай сынақ қажет?
Келесі маңызды қадам — DHB-ні бербериннің анық сипатталған формасымен жеткілікті ұзақ, рандомизацияланған және соқырланған тікелей салыстыру. Экспозиция, еркін және конъюгацияланған метаболиттер, асқазан-ішек төзімділігі, өзара әсер және алдын ала белгіленген клиникалық соңғы нүктелер бірге бағалануы керек. Тек Cmax айырмасы мұндай сынақты алмастырмайды.
Диабет, дислипидемия және бауырдың метаболикалық ауруы бірдей популяция емес. Сынақтың мақсатына қарай HbA1c, ApoB, бейнелеу немесе гистология қажет болуы мүмкін; оқиғалық зерттеу одан да басқа көлем мен уақыт талап етеді. Қазіргі бос орындарды ашық көрсету зерттеу нәтижесінің маңызын төмендетпейді, оның шегін дәл анықтайды.
Әдістемелік ескертпе
Мақала толық бастапқы мәтінді ғылыми өңдеу және негізгі қайшылықтарды нысаналы тексеру арқылы дайындалды. Бұл жаңа эксперимент немесе толық жүйелі шолу емес. Химиялық формалар, тасымал бағыты, LDLR мРНҚ-сының реттелуі, PCSK9 механизмі, DHB хаттамалары, бауыр майын өлшеу әдісі және клиникалық дәлел деңгейлері бастапқы жарияланымдармен салыстырылды; қолжетімділігі шектелген материалдарда тек расталатын сипаттамалар пайдаланылды.
Библиографиялық сәйкессіздіктер түзетілді: бес қатысушылы DHB жұмысы Moon және әріптестеріне, микробтық «витаминге ұқсас» гипотеза Ma және әріптестеріне тиесілі; PCSK9, мета-талдау және бауыр зерттеуінің дұрыс сәйкестендіргіштері сақталды. Расталмаған атомдық байланысу орны, әмбебап кинетикалық шамалар және клиникалық доза теңдігі енгізілген жоқ. Екі схема ықтимал бағыттарды көрсетеді; олар жылдамдықты, толық жолдар жиынтығын немесе емдік тиімділікті өлшемейді. Берберин дерегі DHB-ге жеткіліксіз жерде бұл айырма мәтінде ашық қалдырылды.
Жиі қойылатын сұрақтар
DHB кәдімгі бербериннен клиникалық тұрғыдан жақсы ма?
Дені сау адамдардағы қысқа зерттеулер экспозиция айырмасын қолдайды, бірақ диабет, дислипидемия немесе бауыр ауруында басымдықты дәлелдемейді. Тиісті клиникалық соңғы нүктелері бар ұзақ тікелей сынақтар қажет.
Биожетімділік қатынасына қарай дозаны қайта есептеуге бола ма?
Әмбебап қайта есептеу жоқ. Организм түрі, өнім, доза, метаболиттер және өлшенетін көрсеткіш нәтижені өзгертеді; AUC қатынасы емдік әсердің не қауіпсіздіктің теңдігін анықтамайды.
Статинді немесе метформинді алмастыруға бола ма?
Берберин механизмдері тағайындалған емді өз бетінше алмастыруға негіз бермейді. Диагноз, жеке қауіп, өзара әсер және клиникалық нәтиже дәлелі маңызды; қысқа DHB тәжірибелері осы дәлелді бермейді.
DHB микробиотаға дәл сол әсерді сақтай ма?
Мұны автоматты түрде болжауға болмайды. Басқа ішектік экспозиция жергілікті әсерді өзгертуі мүмкін; жауап бастапқы қауымдастыққа, тағамға және өнімге тәуелді. Берберин дерегі DHB-нің бөлек тексеруін алмастырмайды.