Berberina y dihidroberberina: transporte, AMPK, PCSK9 y evidencia clínica
Berberina y DHB: química y ciclo redox intestinal, transporte, complejo I–AMPK, LDLR–PCSK9, microbiota y estudios humanos de glucemia e hígado. Por qué una mayor exposición no demuestra superioridad clínica.
La berberina (BBR) combina farmacología intestinal, cambios en la energía celular y regulación de receptores hepáticos de lipoproteínas. La dihidroberberina (DHB), su derivado reducido, atraviesa mejor la barrera epitelial en algunas condiciones experimentales. Una concentración mayor de BBR después de DHB, sin embargo, no demuestra mayor reducción de HbA1c, prevención del infarto ni mejor tolerancia a largo plazo. Esos resultados necesitan ensayos comparativos propios.
Hay tres distancias esenciales: del intestino a la sangre, de la concentración total en el tejido a la molécula libre junto a su diana, y del mecanismo molecular al beneficio clínico. La respuesta depende de concentración, duración, tejido, microbiota, formulación e interacciones. DHB modifica la administración y parte del metabolismo; no convierte esta red en un único interruptor seguro.
1. El alcaloide vegetal y su forma reducida
Fuentes botánicas y matriz vegetal
La BBR es un alcaloide isoquinolínico del grupo de las protoberberinas. Aparece en Berberis vulgaris, B. aristata, Mahonia, Coptis chinensis, Hydrastis canadensis y Phellodendron, entre otras plantas de distintas familias. Su contenido depende de especie, órgano, edad y extracción. El color amarillo de algunas raíces y cortezas no determina pureza ni dosis.
Un extracto, BBR purificada, una sal de BBR y DHB son productos diferentes. Otros alcaloides, excipientes, solubilidad y tecnología de entrega pueden modificar la exposición. El uso tradicional de una planta no establece automáticamente la seguridad de un derivado concentrado; la conclusión clínica corresponde a la formulación estandarizada estudiada.
Biosíntesis: dos ramas procedentes de tirosina
En las plantas, derivados de L-tirosina suministran dopamina y 4-hidroxifenilacetaldehído. La norcoclaurina sintasa los reúne en (S)-norcoclaurina; posteriores hidroxilaciones y metilaciones producen (S)-reticulina. La enzima del puente de berberina convierte este intermediario en escoulerina, seguida de otras etapas hasta BBR.
Es una ruta vegetal ramificada, no una secuencia humana lineal «tirosina → L-DOPA → berberina». Explica el origen del esqueleto y del nitrógeno sin indicar que un suplemento de tirosina genere BBR en humanos. La función defensiva vegetal tampoco equivale a eficacia terapéutica en quien consume el compuesto.
Catión, sal y estructura electrónica
El catión BBR tiene fórmula C20H18NO4+ y masa molar aproximada de 336,36 g/mol. Una sal incorpora un contraión; el cloruro anhidro y las formas hidratadas tienen masas diferentes. Comparar miligramos exige conocer qué forma y contenido activo declara el producto (PubChem).
La carga positiva pertenece al sistema conjugado de la protoberberina. BBR no es una amina terciaria corriente que alterne libremente entre forma neutra y cargada. La hidratación, los pares iónicos y la unión a proteínas dependen del medio; la palabra «catión» no predice por sí sola la solubilidad o distribución cuantitativa.
Qué cambia al formar DHB
La DHB tiene fórmula C20H19NO4 y masa aproximada de 337,37 g/mol. La reducción modifica la región iminio y la conjugación, incorporando un hidrógeno al esqueleto. La semirreacción formal es:
Es un balance de masa y carga, no la descripción completa de una enzima. Añadir a la vez un hidruro al carbono y otro hidrógeno al nitrógeno manteniendo esa fórmula sería incoherente. DHB contiene una amina terciaria cuya protonación depende del pH; «DHB neutra» designa una forma química, no ausencia de carga en cualquier ambiente.
La conjugación y la fracción no cargada pueden favorecer el paso membranal. No desaparecen la hidratación de grupos oxigenados, la unión proteica o el metabolismo. Un logP o una energía de transferencia universales sin pH, forma y método introducirían una precisión engañosa.
La baja exposición plasmática no significa inactividad
La escasa BBR original en plasma puede reflejar absorción incompleta, metabolismo intestinal y hepático, eflujo, distribución y conjugación. La biodisponibilidad absoluta requiere una referencia intravenosa. Un porcentaje animal no establece la fracción universal absorbida por humanos.
Luz intestinal, enterocito, sangre portal y hepatocito reciben exposiciones distintas. Una concentración periférica pequeña puede coexistir con acciones locales y distribución tisular. A la inversa, una AUC total mayor no garantiza la concentración libre necesaria en una diana intracelular.
P-glicoproteína y tolerancia digestiva
La P-glicoproteína, ABCB1, utiliza ATP para exportar sustratos. En el epitelio intestinal, su localización apical permite devolver compuestos a la luz. Experimentos apoyan su participación en el transporte limitado de BBR; no prueban un sitio atómico de unión por disponer de una estructura cualquiera de P-gp (Pan, 2002; Feng, 2015).
Una forma neutra no queda automáticamente excluida de todos los exportadores. DHB mostró menos eflujo en el modelo de Feng, pero la razón no fue uno. Los síntomas digestivos de BBR tampoco tienen una explicación osmótica única: exposición local, motilidad, microbiota y producto pueden intervenir. No es válido prometer su desaparición completa con DHB.
2. Conversión intestinal y farmacocinética
Reducción microbiana
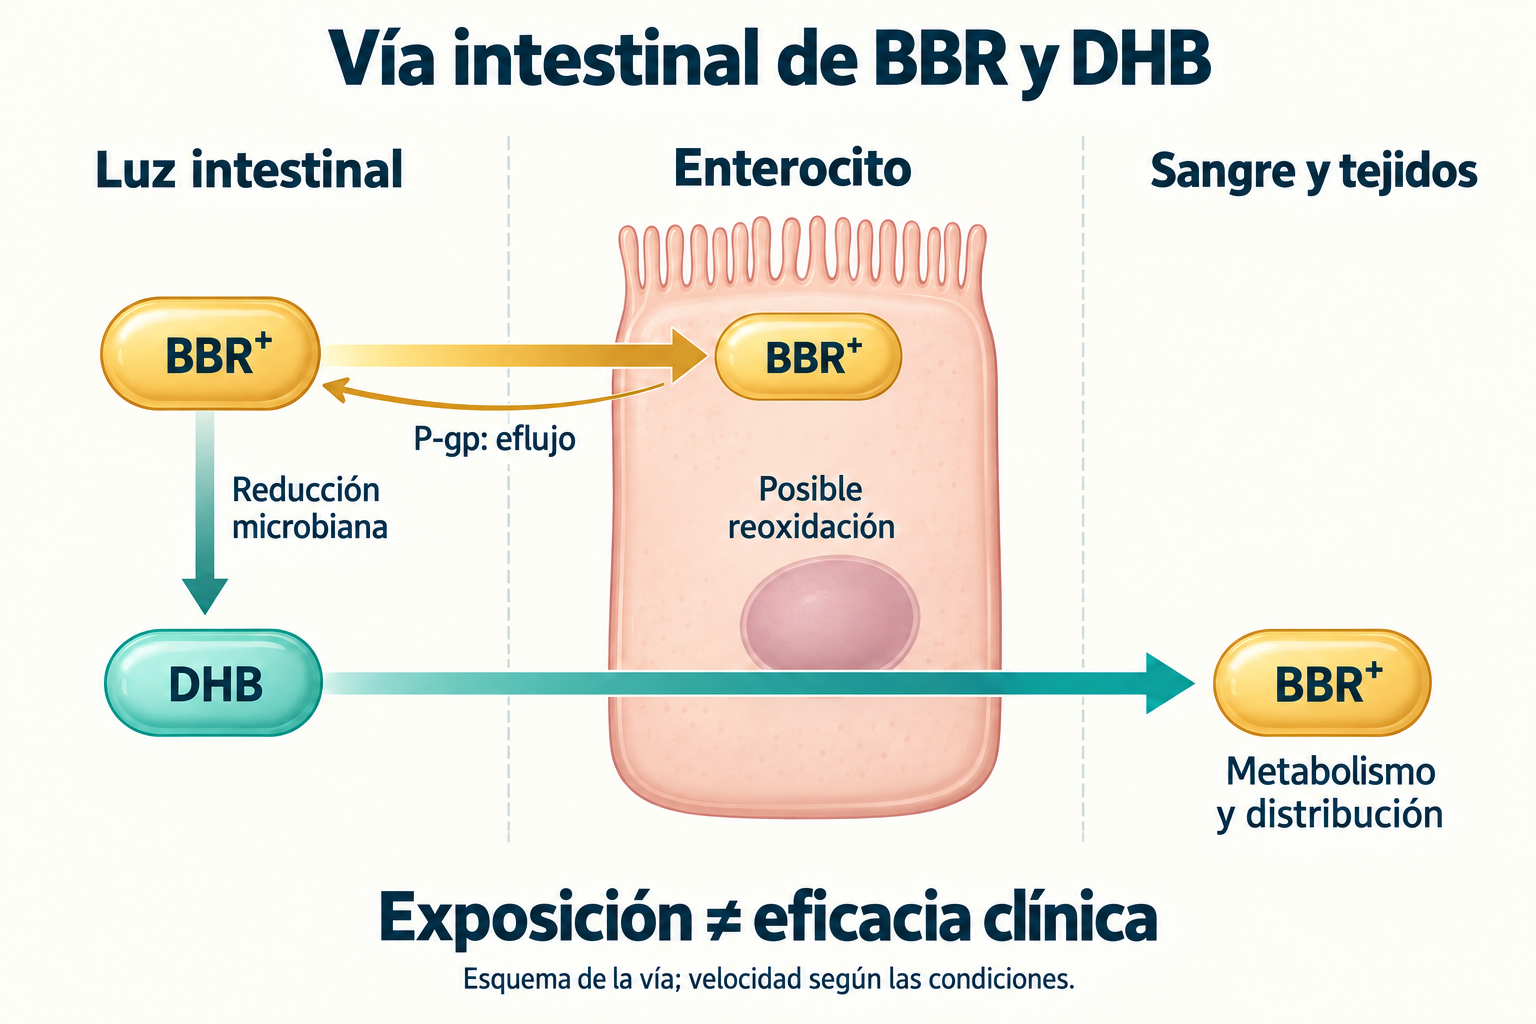
Feng y colaboradores demostraron la conversión bacteriana de BBR en DHB de transporte más favorable, relacionada con actividad nitroreductasa. Examinaron cultivos, sistemas intestinales y animales. Esto apoya la participación microbiana en la exposición, sin asignar a todas las personas la misma velocidad de conversión.
Las nitroreductasas forman un grupo heterogéneo. El nombre de la actividad no identifica una enzima, cofactor o constante cinética universal; tampoco autoriza el número EC de otra familia reductasa. Comunidad, equivalentes reductores y sustratos competidores condicionan el flujo.
Qué mide Caco-2
En el estudio de Feng, la permeabilidad aparente apical-basolateral fue 4,51 × 10⁻⁶ cm/s para DHB y 0,38 × 10⁻⁶ para BBR: una diferencia aproximada de 11,9 veces. Las razones de eflujo fueron 1,58 y 32,39. El resultado combina mayor paso hacia adelante con menor transporte inverso en esas condiciones.
Caco-2 es un modelo celular, no una medición de biodisponibilidad absoluta humana. Maduración, concentración, tiempo, pH y transportadores modifican el resultado. Papp no permite calcular directamente una dosis terapéutica ni garantizar la misma ventaja intestinal individual.
Reoxidación sin una FMO obligatoria
DHB puede volver a BBR después del transporte. En los experimentos de Feng, la oxidación persistió tras hervir el homogeneizado intestinal, apoyando un componente predominantemente no enzimático en el sistema ensayado. El entorno oxidativo influyó; la contribución de enzimas y química in vivo requiere evaluación adicional.
No debe describirse una FMO obligatoria que convierta toda DHB en un número fijo de minutos. Esta oxidación es distinta de la formación de TMAO por FMO3 hepática. Un proceso redox y sus posibles productos tampoco establecen beneficio o inocuidad incondicionales.
Comparaciones animales y «profármaco»
Con iguales dosis orales en una pequeña comparación de ratas, DHB produjo una AUC de BBR aproximadamente 4,8 veces mayor y una Cmax 3,25 veces mayor, con tres animales por grupo. Es una señal útil para desarrollar formulaciones, limitada cuantitativamente por especie y tamaño muestral.
DHB puede facilitar la entrega cuando se demuestran transporte y conversión. Llamarla profármaco no establece que ella y todos sus metabolitos sean inertes. La exposición luminal, el tiempo de aparición y el perfil metabólico pueden cambiar el efecto aunque se mida la misma BBR circulante.
El piloto de Moon: cuatro administraciones y cinco hombres
El trabajo de Moon corresponde a Nutrients 2022 y se publicó en línea en diciembre de 2021. Cinco hombres sanos completaron periodos cruzados aleatorizados con placebo, 500 mg BBR o 100/200 mg DHB. Cada periodo incluyó tres administraciones el día anterior y una cuarta con una comida de prueba; se tomaron muestras durante dos horas. Las cantidades describen el ensayo, no una recomendación.
DHB aumentó la exposición plasmática de BBR, pero no se detectó una diferencia convincente en el efecto agudo sobre glucosa o insulina. Personas sanas, seguimiento corto, pocos participantes y diferencias basales limitan la interpretación. No se demostró cambio crónico de HbA1c, LDL-C, fibrosis, eventos ni equivalencia terapéutica con varios gramos diarios de BBR.
Metabolitos y nuevas formulaciones
Chang y colaboradores compararon en 2024 DHB y una formulación micelar específica de BBR en Caco-2 y nueve voluntarios sanos durante 24 horas. Estudiaron BBR y perfiles de metabolitos. Así se muestra que productos relacionados pueden generar mezclas circulantes diferentes.
Micelas, sales, pares iónicos y reducción modifican la exposición por vías distintas. La ventaja de una AUC concreta no establece superioridad en todas las variables ni se extiende a cualquier producto. Eficacia crónica y seguridad comparativa necesitan ensayos propios en la población destinataria.
Cómo leer la comparación
| Rasgo | Berberina | Dihidroberberina | Límite |
|---|---|---|---|
| Forma | Catión conjugado, frecuentemente sal | Molécula reducida con protonación dependiente del pH | Masa de sal y componente activo no son iguales |
| Caco-2 de Feng | Papp 0,38 × 10⁻⁶ cm/s; eflujo 32,39 | Papp 4,51 × 10⁻⁶; eflujo 1,58 | Modelo celular, no disponibilidad absoluta humana |
| Ratas, dosis iguales | Exposición de referencia | AUC BBR 4,8 veces; Cmax 3,25 veces mayor | Tres animales por grupo; condiciones específicas |
| Piloto Moon | 500 mg en periodos de cuatro administraciones | 100/200 mg en periodos equivalentes | Cinco hombres sanos, ensayo PK breve |
| Resultados crónicos | Ensayos clínicos con limitaciones | No hereda automáticamente resultados de BBR | Ventaja PK no equivale a superioridad clínica |
| Tolerancia | Síntomas e interacciones descritos | Comparaciones prolongadas propias necesarias | Mayor exposición puede modificar riesgo |
3. Entrada celular y AMPK
OCT, MATE y compartimentos
El transporte catiónico incluye más que difusión. Shi y colaboradores implicaron OCT2 y MATE1 en transporte renal direccional de BBR en ratas en 2018. Su estudio de 2019 mostró interacciones con el transporte de metformina en sistemas con OCT1, OCT2 y MATE1 de rata.
Esto no demuestra que OCT1 hepático humano sea la única ruta de BBR hacia mitocondrias ni que DHB evite transportadores en todos los tejidos. Las isoformas OCT difieren en localización y sustratos; MATE y transportadores ABC influyen en eliminación. Cambiar el transporte modifica exposición local y posibilidades de interacción.
Potencial membranal y acumulación condicionada
La membrana mitocondrial interna mantiene un potencial negativo en la matriz respecto del citosol. Para un catión monovalente libre y permeable, la contribución eléctrica de equilibrio se representa con Nernst:
Δψ es potencial de matriz menos citosol; z, carga; F, constante de Faraday; R, constante de gases; T, temperatura absoluta. Un Δψ negativo favorece acumulación en el modelo ideal. La fórmula explica una tendencia, no mide BBR ni fija una relación de mil veces.
Unión, permeabilidad limitada, metabolismo, transporte activo y cambios del potencial pueden impedir ese equilibrio. Recuperar compuesto en una fracción mitocondrial no determina automáticamente la concentración libre junto al complejo I.
Complejo I y coste energético
El complejo I transfiere electrones de NADH a ubiquinona y acopla el proceso al movimiento de protones. Su parte química se escribe:
La translocación protónica es un componente adicional acoplado. Turner relacionó BBR y DHB con inhibición experimental del complejo I y cambios energéticos. No se establece por ello un único bolsillo atómico como explicación de todos los efectos.
Inhibir el complejo I difiere del desacoplamiento protónico descrito en UCP y desacoplamiento mitocondrial. Ambos cambian energía por pasos diferentes. La persistencia de otros complejos no hace que la inhibición sea siempre leve; importan intensidad, duración y demanda de ATP.
Adenilato cinasa y señal energética
El desequilibrio entre generación y consumo de ATP cambia ATP, ADP y AMP. La adenilato cinasa redistribuye nucleótidos:
AMP puede cambiar proporcionalmente más que ATP. La amplificación depende de reservas iniciales, compartimento y sistemas amortiguadores, incluida la creatina cinasa; no es una constante universal de BBR.
AMPK detecta estrés energético sin certificar su beneficio. Compensación e insuficiencia energética tienen consecuencias diferentes, especialmente en tejidos exigentes. Una concentración experimental también puede superar la exposición tisular libre de un producto oral.
Arquitectura de AMPK y Thr172
AMPK integra subunidades α catalítica, β reguladora y γ de unión a nucleótidos. Los motivos CBS de γ no representan cuatro sitios intercambiables equivalentes. AMP favorece activación alostérica y protección de la fosforilación; ADP tiene funciones distintas y dependientes del contexto.
La fosforilación de Thr172 en α aumenta la actividad. LKB1–STRAD–MO25 participa en la respuesta energética y CaMKK2 ofrece una vía dependiente del calcio. Lee, Brusq y Turner apoyan cambios relacionados con AMPK, sin hacerla única diana ni probar una respuesta idéntica de todas las isoformas (Hardie, 2012).
ACC, malonil-CoA y lanzadera de carnitina
ACC genera malonil-CoA utilizando ATP y bicarbonato. Su fosforilación por AMPK puede reducir actividad; la numeración de sitios varía con isoforma y especie. Un solo número de serina no constituye marcador humano universal.
Malonil-CoA alimenta lipogénesis e inhibe CPT1. Su reducción puede facilitar la entrada de ácidos grasos largos: CPT1 forma acilcarnitina, CACT la transporta y CPT2 regenera acil-CoA matricial. CPT1 y oxidación de ácidos grasos explica esta organización.
Abrir la entrada no garantiza oxidación completa: hacen falta respiración, oxígeno y demanda adecuados. La inhibición importante de complejo I no prueba aceleración ilimitada de β-oxidación. Entrada, síntesis, oxidación y exportación determinan el balance lipídico final.
SREBP-1c, ChREBP y lipogénesis
SREBP-1c regula parte de la síntesis de ácidos grasos. Su precursor membranal se procesa mediante SCAP, salida del retículo y proteólisis en Golgi. AMPK puede influir en fosforilación y maduración; reducir transcripción de FASN o SCD1 no equivale a apagar inmediatamente todas las enzimas.
ChREBP enlaza flujo de carbohidratos y transcripción mediante varios controles. Un efecto AMPK en un modelo no establece que un sitio de fosforilación elimine universalmente lipogénesis. El hígado recibe, sintetiza, oxida y exporta lípidos simultáneamente; una vía no decide todo el contenido graso.
GLUT4, Rab e insulina
En músculo y tejido adiposo, trasladar GLUT4 a la superficie aumenta transporte disponible. TBC1D1 y TBC1D4/AS160 son Rab-GAP que regulan hidrólisis de GTP. Fosforilación y unión a 14-3-3 cambian la red según tejido y estímulo.
AMPK se cruza con PI3K–Akt de insulina sin reemplazarla universalmente. En BBR se discuten también p38 MAPK, utilización de glucosa y energía. GLUT4 es transportador, no una enzima necesariamente más catalítica; captación celular no demuestra equivalencia con un medicamento antidiabético.
Gluconeogénesis, CRTC2 y NAD+
CRTC2 es coactivador de CREB, antes denominado TORC2, distinto de mTORC2. Fosforilación y retención citosólica con 14-3-3 pueden limitar señales ligadas a PCK1 y G6PC. También intervienen SIK y otras cinasas, por lo que no toda la cadena es una acción directa única de AMPK (Koo, 2005).
La reorganización energética puede modificar NAD+ y SIRT1, como mostró Cantó. Esto no significa supresión universal de gluconeogénesis: FOXO y PGC-1α tienen funciones contextuales durante ayuno. Las rutas de rescate de NAD+ ayudan a entender tejido, alimentación y tiempo; una vía común no demuestra un beneficio de combinar suplementos.
4. LDLR y PCSK9: producción y destino del receptor
Estabilidad del ARNm frente a respuesta a estatinas
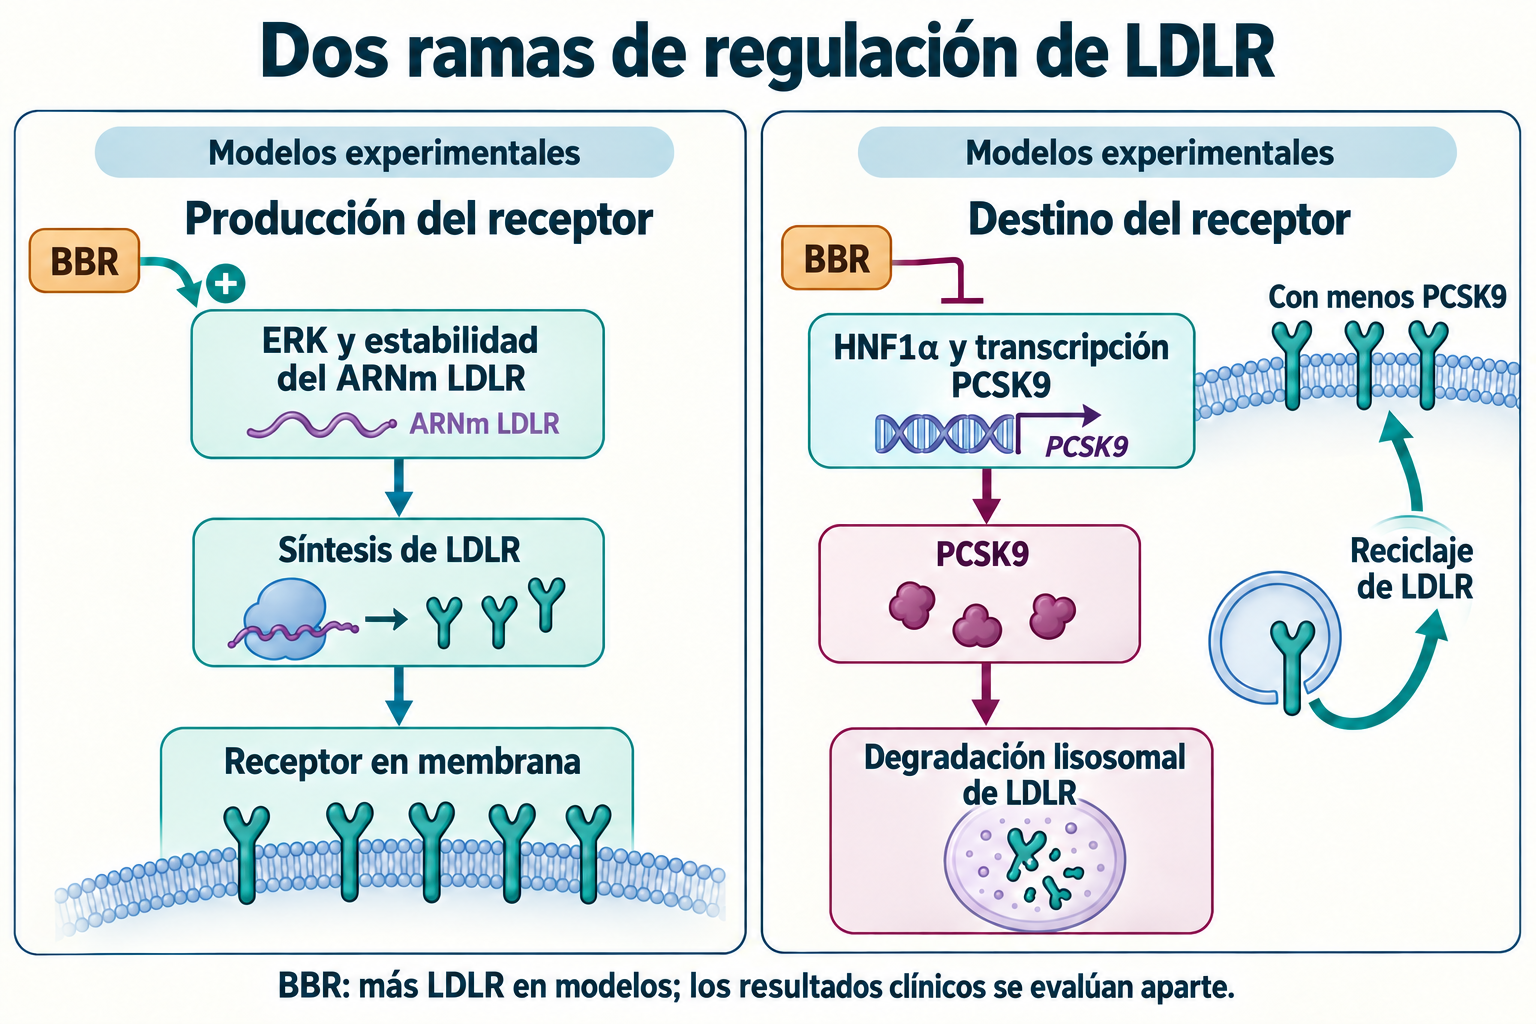
Los hepatocitos retiran parte de las lipoproteínas mediante LDLR. Más receptores funcionales de superficie y retorno eficaz tras endocitosis pueden aumentar captación. Kong relacionó BBR con estabilidad del ARNm LDLR, y Abidi precisó ERK y la región 3′ no traducida.
Las estatinas reducen síntesis de colesterol mediante HMG-CoA reductasa y desencadenan transcripción LDLR dependiente de SREBP2. Estabilizar un transcrito existente es otro control. Permite estudiar combinaciones sin probar igual potencia, independencia completa o reemplazo de tratamientos con resultados establecidos.
Proteínas de unión a RNA: dirección correcta
Los elementos ricos en AU del 3′-UTR interactúan con proteínas que favorecen degradación. Li estudió en 2009 hnRNP D, hnRNP I y KSRP; interferir con su unión podía aumentar estabilidad de ARNm. Representar toda unión más intensa como protección invertiría el mecanismo.
Múltiples proteínas y elementos regulan la vida del transcrito. HepG2 no establece una vía exclusiva del hígado normal. ARNm, proteína total, receptor superficial y eliminación real de partículas son mediciones diferentes.
PCSK9 favorece degradación
La PCSK9 secretada se une a LDLR, con participación del dominio EGF-A, y favorece destino lisosomal en lugar de reciclaje eficaz. Su autoprocesamiento importa para maduración y secreción, pero no significa que corte directamente LDLR o una covalentemente receptores (Cunningham, 2007).
Menos PCSK9 puede conservar receptores funcionales disponibles. Defectos graves de LDLR limitan el efecto; más receptores defectuosos no garantizan captación normal. La vía tampoco elimina todas las clases de remanentes por una sola ruta.
HNF1α y regulación de PCSK9
SREBP2 y HNF1α regulan el promotor PCSK9. Li identificó un sitio HNF1 importante y cooperación de factores en HepG2. Dong en 2015 vinculó menor proteína HNF1α con el sistema ubiquitina–proteasoma; los inhibidores de proteasoma apoyaron el mecanismo en los modelos ensayados.
No se demuestra cese universal de síntesis HNF1α ni una caída porcentual fija de PCSK9 plasmática humana. HNF1α controla numerosos genes y exige valorar otras consecuencias. Exposición, especificidad tisular y seguridad humanas necesitan comprobación propia.
Endocitosis y significado de los lípidos
LDLR reconoce señales apolipoproteicas pertinentes, como ApoB100 o ApoE en distintas partículas. Los endosomas ácidos favorecen separación de la lipoproteína; el receptor normalmente retorna a la membrana. PCSK9 modifica ese reparto: producción y conservación del receptor son procesos separados.
LDL-C mide masa de colesterol, mientras ApoB refleja otra dimensión de la carga aterogénica, relacionada con número de partículas. Un cambio no especifica automáticamente el otro ni eventos. Producción de VLDL, procesamiento, genética y tratamiento de fondo también influyen.
Estatinas, ezetimiba y anticuerpos PCSK9
La respuesta SREBP2 a estatinas puede aumentar LDLR y PCSK9. Es compensación, no fracaso inevitable ni ausencia de beneficio cardiovascular. La supresión experimental por BBR apoya una hipótesis complementaria sin demostrar compensación de todas las limitaciones clínicas (Cameron, 2008).
Ezetimiba actúa en NPC1L1; los anticuerpos PCSK9 reducen acción del regulador extracelular. IMPROVE-IT y FOURIER evaluaron eventos al añadir esos medicamentos a tratamientos apropiados. Compararlos con un ensayo pequeño de LDL-C con BBR confunde niveles de evidencia; combinaciones necesitan datos directos e interacciones evaluadas.
5. Microbiota, barrera y señales metabólicas
Actividad antimicrobiana y ecología
BBR puede modificar competencia, intercambio de sustratos y alimentación cruzada por su exposición luminal y actividad antimicrobiana. Zhang estudió cambios de microbiota en ratas con dieta rica en grasa. Abundancia relativa no equivale necesariamente a crecimiento absoluto ni demuestra un prebiótico universal.
Akkermansia, Bifidobacterium y productores de butirato difieren en cepas y funciones. No se garantiza aumentar todos los organismos beneficiosos y eliminar patógenos. DHB puede dejar la luz más fácilmente y generar efectos locales distintos aun con BBR plasmática semejante.
Ácidos grasos cortos y hormonas intestinales
Acetato, propionato y butirato proceden del metabolismo microbiano. Participan en energía epitelial y señales; su concentración fecal combina producción, consumo y absorción. El butirato puede alimentar colonocitos y modificar desacetilasas según célula y exposición.
FFAR2 y FFAR3 intervienen en señales relacionadas con células L, GLP-1 y PYY. FFAR2 puede acoplarse a Gq y Gi/o; FFAR3 predominantemente a Gi/o. No tienen una cadena PLC–IP3–Ca2+ obligatoria idéntica. Cambiar señales endógenas tampoco equivale a un agonista farmacológico GLP-1.
Uniones estrechas y permeabilidad
Claudinas participan en selectividad paracelular, ocludina en organización y ZO-1 en unión a estructuras intracelulares y actina. Expresión proteica, resistencia eléctrica y flujo de marcadores miden propiedades diferentes. Ninguna por sí sola demuestra restauración clínica de todo el intestino.
La relación barrera–microbiota es relevante en modelos inflamatorios, pero contactos y funciones varían por región y estado. «Permeabilidad aumentada» necesita un método definido; no explica por sí misma cualquier obesidad o diabetes.
LPS, TLR4 e inflamación
CD14–MD2–TLR4 reconoce lipopolisacárido y puede activar MyD88, IKK, NF-κB y mediadores. Cani proporcionó evidencia causal de endotoxemia metabólica en experimentos animales concretos. Vincula intestino y metabolismo sin establecer la única causa de resistencia insulínica humana.
Menos marcadores no demuestra bloqueo completo TLR4 ni eliminación de toda inflamación. Medir LPS sanguíneo bajo tiene dificultades metodológicas. Debe considerarse con resultados clínicos, tejido adiposo y otras respuestas inmunitarias heterogéneas.
Colina, carnitina y TMA–TMAO
Algunas bacterias convierten colina en TMA mediante CutC/CutD. CutC es una enzima de radical glicilo, CutD participa en activación radical y también se genera acetaldehído. L-carnitina tiene otras rutas; CutC no degrada necesariamente todos los precursores.
FMO3 hepática oxida TMA a TMAO. Wang y Koeth relacionaron rutas microbio-huésped con modelos ateroscleróticos y observaciones humanas. Dieta y función renal condicionan TMAO; asociación no prueba toxicidad universal ni prevención de infarto mediante su reducción.
Ma: mecanismo y señal humana limitada
Ma en 2022 estudió BBR y DHB en cultivos y animales, proponiendo interacciones con procesos enzimáticos y coenzimáticos microbianos del eje colina–TMA–TMAO. El «vitamine-like effect» del título es una interpretación, no convierte DHB en vitamina ni establece un modo único de inhibición competitiva o no competitiva.
En 21 pacientes se evaluó una puntuación ecográfica de placa durante cuatro meses. No fue una gran comparación aleatorizada con placebo, estatinas o DHB ni demostró menos eventos. Puntuación, área, volumen y desenlace clínico deben conservar sus diferencias.
6. Datos clínicos y preguntas abiertas
Yin: glucemia y tolerabilidad
Yin en 2008 distribuyó 36 adultos con diabetes reciente entre BBR y metformina durante tres meses; otra parte añadió BBR en 48 pacientes mal controlados. En la primera rama BBR, HbA1c pasó de 9,5% a 7,5%. Es un resultado específico con glucemia inicial elevada, no un pronóstico universal.
La similitud observada no demuestra no inferioridad formal a metformina. Veinte participantes expuestos a BBR tuvieron síntomas GI transitorios, 34,5% del conjunto correspondiente analizado. No es tasa universal ni de abandono. La ausencia de lesión hepática o renal detectada a corto plazo no establece seguridad prolongada en enfermedad grave.
Ensayo controlado de Zhang
Zhang aleatorizó 116 pacientes con diabetes y dislipidemia a BBR o placebo por tres meses. Evaluó glucosa, lípidos y sensibilidad insulínica, incluido el clamp euglucémico hiperinsulinémico. Es evidencia clínica más directa que extrapolar una señal AMPK celular.
Un biomarcador breve no determina años de complicaciones. Formulación, enfermedad inicial e intervenciones simultáneas influyen. Los resultados de BBR no se asignan automáticamente a DHB ni a personas sanas con valores normales.
Metaanálisis y heterogeneidad
Dong 2012 y Lan 2015 combinaron estudios de diabetes y otros parámetros metabólicos. Apoyaron señales glucémicas y lipídicas, pero agrupar no repara muestras pequeñas, cegamiento insuficiente, controles variables o sesgo de publicación. La media no es pronóstico individual exacto.
Debe distinguirse BBR sola, complemento de un fármaco y producto combinado. Arroz de levadura roja puede contener sustancias similares a estatinas; un ensayo de esa mezcla no identifica aportación de BBR ni prueba ausencia de riesgos farmacológicos.
Grasa hepática: MRS y MASH no son equivalentes
Yan estudió de forma abierta y aleatorizada a 184 pacientes durante 16 semanas con cambios de estilo de vida solos o junto con pioglitazona o BBR. Midió grasa mediante espectroscopia de resonancia magnética protónica, 1H-MRS. La reducción relativa fue 52,7% con BBR más estilo de vida frente a 36,4% con estilo de vida solo.
No son 52,7 puntos porcentuales absolutos. MRS no debe llamarse MRI-PDFF. No se estableció resolución histológica de MASH ni regresión de fibrosis; esteatosis, transaminasas y HOMA-IR no sustituyen biopsia o eventos. Diseño abierto y duración corta limitan la conclusión.
Peso e inflamación: tamaño del efecto
El peso puede cambiar junto con glucemia o grasa hepática, condicionado por dieta, actividad y tratamiento. No se pueden prometer kilogramos o porcentajes viscerales fijos para todos los productos. Menos hs-CRP tampoco identifica un mecanismo causal único.
NCCIH describe evidencia de pérdida de peso heterogénea y limitada. No excluye efecto, pero delimita confianza: «activador AMPK» no sustituye ensayo de peso real, tolerancia y persistencia. Un piloto PK de DHB no aporta una comparación crónica inexistente.
Fuerza de evidencia por pregunta
| Pregunta | Apoyo | Lo no demostrado |
|---|---|---|
| ¿Mejora DHB transporte/exposición? | Caco-2, animales, pequeños pilotos humanos | Relación universal o equivalencia terapéutica |
| ¿Modifica BBR AMPK y LDLR/PCSK9? | Mecanismos bioquímicos, celulares y animales | Una diana exclusiva o efectos humanos idénticos |
| ¿Cambian glucosa y lípidos? | Ensayos BBR y metaanálisis limitados | Superioridad DHB o menos complicaciones prolongadas |
| ¿Baja grasa hepática? | Ensayo abierto BBR con 1H-MRS | Resolución MASH o regresión de fibrosis |
| ¿Se previenen eventos? | Ensayos de estrategias farmacológicas concretas | Traslado automático a BBR/DHB |
| ¿Se tolera mejor DHB crónicamente? | Se requieren comparaciones propias | Cero riesgo GI, interacciones o abandono |
7. Metabolismo, interacciones y seguridad
Fase I y conjugación
Desmetilación y desmetilenación de BBR producen, entre otros, berberrubina, talifendina, demetilenberberina y jatrorrizina. Pueden seguir glucuronidación y sulfatación. Molécula original, metabolitos libres y total tras hidrolizar conjugados representan conjuntos analíticos distintos.
Un metabolito no es necesariamente inactivo, pero actividad celular no se asigna sin más a su conjugado. DHB puede cambiar proporciones metabólicas al aumentar exposición. Chang examinó ese aspecto; un único pico plasmático no compara por completo formulaciones.
Evidencia humana de CYP
Guo empleó sustratos de prueba tras administrar BBR repetidamente a voluntarios. Menor actividad CYP2D6, CYP2C9 y CYP3A4 demuestra interacciones posibles pese a bajas concentraciones de compuesto original. El resultado pertenece al régimen investigado, no a toda forma ni a todos los CYP.
Enzimas intestinales, metabolitos y transportadores también importan. El parentesco químico no demuestra ausencia de interacciones de DHB. Mecanismo propuesto, concentración alterada de un fármaco y daño clínico demostrado son niveles distintos.
Inmunosupresores, anticoagulantes y medicamentos metabólicos
La interacción clínica BBR–ciclosporina está documentada y señalada por NCCIH. En medicamentos de margen estrecho, la exposición puede importar sin síntomas inmediatos. No se asigna la misma magnitud a tacrolimus o a todos los inmunosupresores.
Con anticoagulantes o antidiabéticos se evalúan metabolismo, transporte y efectos sumados. No implica sangrado inevitable, pero pocos datos tampoco prueban seguridad. OCT/MATE y metformina muestran un componente experimental de interacción, sin definir dosis humanas.
Más disponibilidad no garantiza menos riesgo
Menos masa de DHB puede generar más BBR plasmática en ciertas condiciones. Facilita entrega y exige reevaluar metabolismo, interacciones y carga tisular. Menos compuesto luminal no demuestra menor riesgo sistémico ni cero efectos digestivos.
Pocos voluntarios sanos no detectan de modo fiable acontecimientos raros o problemas crónicos en polimedicados. Hacen falta productos y seguimiento comparables y datos de abandonos. «Natural», «reducida» o «biodisponible» no constituyen una evaluación de seguridad completa.
Embarazo, lactancia, infancia y órganos
NCCIH considera potencialmente peligrosa la exposición infantil por acumulación de bilirrubina y posible daño neurológico. Embarazo y lactancia también pueden implicar riesgo fetal o infantil. Ausencia de datos directos sobre DHB no prueba seguridad.
Disfunción hepática o renal grave puede cambiar eliminación de sustancias. Sin estudios propios no se deriva un umbral universal de eGFR o Child–Pugh seguro para BBR/DHB. Excluir pacientes limita aplicabilidad del ensayo, sin revelar dosis segura para ellos.
Seguimiento y decisión
El seguimiento depende del objetivo, enfermedad, fármacos y riesgo. HbA1c cubre otro horizonte temporal que una respuesta de glucosa de dos horas; LDL-C, ApoB, hígado y síntomas contestan preguntas diferentes. Un marcador AMPK no basta para evaluar tratamiento.
Este artículo no establece reemplazo autónomo de estatinas o metformina, ciclos de DHB ni un intervalo de análisis universal. Necesitarían evidencia del paciente y producto. La tarea científica es identificar el paso cambiado y el ensayo que sustenta el resultado deseado.
8. Integrar mecanismos conservando los desenlaces
Tres compartimentos y dos vías hepáticas
BBR interactúa con microbiota en la luz; el enterocito añade transporte, eflujo y conversión; tejidos añaden distribución y metabolismo. DHB modifica la secuencia sin hacer irrelevante el intestino. Pueden diferir tanto acciones locales como sistémicas.
AMPK influye en utilización y síntesis; LDLR/PCSK9 en producción y destino del receptor. Se cruzan con metabolismo general sin formar una cadena lineal comprobada. LDL-C menor no certifica activación humana AMPK, y AMPK no demuestra conservación LDLR.
Estrategias lipídicas comparadas
| Estrategia | Control principal discutido | Evidencia necesaria |
|---|---|---|
| BBR | Estabilidad ARNm LDLR, PCSK9 en modelos, metabolismo múltiple | Producto estandarizado, variables humanas, resultados y seguridad |
| DHB | Transporte, redox y exposición | PK propia y ensayos clínicos comparativos |
| Estatina | HMG-CoA reductasa, respuesta SREBP2 | Resultados del fármaco y población de riesgo |
| Ezetimiba | NPC1L1 y entrada de colesterol | Ensayos de combinación como IMPROVE-IT |
| Anticuerpo PCSK9 | Interacción extracelular PCSK9–LDLR | Eventos y seguridad como FOURIER |
Qué debe resolver otro ensayo
DHB necesita comparaciones prolongadas con BBR que incluyan metabolitos, tolerancia, interacciones y resultados relevantes, además del compuesto plasmático. Aleatorización, cegamiento y análisis predefinido distinguen entrega de beneficio. Diabetes, dislipidemia y metabolismo normal pueden generar balances diferentes.
Más exposición justifica investigar una formulación, sin concluir su eficacia. Plausibilidad AMPK/PCSK9, microbiota y señales breves de BBR son partes distintas del argumento. Se conectan mediante mediciones, no mediante promesas universales de protección.
Método y límites de preparación
La versión es una reconstrucción editorial científica del original completo, con verificaciones dirigidas de fuentes primarias sobre química, redox intestinal, PK de DHB, transportadores, LDLR/PCSK9 y conclusiones clínicas relevantes. No es revisión sistemática ni experimento nuevo. Se corrigieron referencias, dirección de proteínas de RNA, protocolo DHB y medición hepática; se retiraron sitios atómicos no apoyados, cifras universales y equivalencias terapéuticas.
Las dos ilustraciones explican rutas posibles y etapas separadas del receptor en modelos. Sus flechas no fijan velocidades, conversión completa ni dosis humanas. La comprobación selectiva no cubre toda literatura; la falta de comparación apropiada de DHB sigue siendo un vacío, sin heredar resultados de BBR o tratamientos establecidos.
Preguntas frecuentes
¿Es DHB clínicamente mejor que la berberina convencional?
Los estudios breves en personas sanas apoyan diferencias de exposición, pero no demuestran superioridad en diabetes, dislipidemia o enfermedad hepática. Se necesitan ensayos directos más prolongados con desenlaces clínicos adecuados.
¿Puede convertirse la dosis según la biodisponibilidad?
No existe una conversión universal. Especie, producto, dosis, metabolitos y variable medida cambian el resultado; una relación de AUC no establece equivalencia terapéutica ni de seguridad.
¿Puede sustituir una estatina o metformina?
Los mecanismos de la berberina no justifican sustituir por cuenta propia un tratamiento prescrito. Importan el diagnóstico, los riesgos individuales, las interacciones y la evidencia de desenlaces clínicos, que los experimentos breves de DHB no aportan.
¿Mantiene DHB los mismos efectos sobre la microbiota?
No puede darse por supuesto. Una exposición intestinal distinta puede cambiar los efectos locales; la respuesta depende de la comunidad inicial, la dieta y el producto. Los datos de berberina no sustituyen la evaluación específica de DHB.
Fuentes
- Kong W et al. Berberine is a novel cholesterol-lowering drug working through a unique mechanism distinct from statins. Nature Medicine. 2004;10:1344–1351.
- Feng R et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Scientific Reports. 2015;5:12155.
- Moon JM, Ratliff KM, Hagele AM, Stecker RA, Mumford PW, Kerksick CM. Absorption Kinetics of Berberine and Dihydroberberine and Their Impact on Glycemia: A Randomized, Controlled, Crossover Pilot Trial. Nutrients. 2022;14:124.
- Chang C et al. Differences in Metabolite Profiles of Dihydroberberine and Micellar Berberine in Caco-2 Cells and Humans—A Pilot Study. International Journal of Molecular Sciences. 2024;25:5625.
- Turner N et al. Berberine and its more biologically available derivative, dihydroberberine, inhibit mitochondrial respiratory complex I. Diabetes. 2008;57:1414–1418.
- Brusq JM et al. Inhibition of lipid synthesis through activation of AMP kinase: an additional mechanism for the hypolipidemic effects of berberine. Journal of Lipid Research. 2006;47:1281–1288.
- Lee YS et al. Berberine, a natural plant product, activates AMP-activated protein kinase with beneficial metabolic effects in diabetic and insulin-resistant states. Diabetes. 2006;55:2256–2264.
- Hardie DG, Ross FA, Hawley SA. AMPK: a nutrient and energy sensor that maintains energy homeostasis. Nature Reviews Molecular Cell Biology. 2012;13:251–262.
- Abidi P et al. Extracellular signal-regulated kinase-dependent stabilization of hepatic low-density lipoprotein receptor mRNA by berberine. Arteriosclerosis, Thrombosis, and Vascular Biology. 2005;25:2170–2176.
- Li H et al. Identification of mRNA binding proteins that regulate the stability of LDL receptor mRNA through AU-rich elements. Journal of Lipid Research. 2009;50:820–831.
- Cameron J et al. Berberine decreases PCSK9 expression in HepG2 cells. Atherosclerosis. 2008;201:266–273.
- Li H et al. Hepatocyte nuclear factor 1alpha plays a critical role in PCSK9 gene transcription and regulation by the natural hypocholesterolemic compound berberine. Journal of Biological Chemistry. 2009;284:28885–28895.
- Dong B et al. Inhibition of PCSK9 transcription by berberine involves down-regulation of hepatic HNF1α protein expression through the ubiquitin-proteasome pathway. Journal of Biological Chemistry. 2015;290:4047–4058.
- Yin J, Xing H, Ye J. Efficacy of berberine in patients with type 2 diabetes mellitus. Metabolism. 2008;57:712–717.
- Zhang Y et al. Treatment of type 2 diabetes and dyslipidemia with the natural plant alkaloid berberine. Journal of Clinical Endocrinology & Metabolism. 2008;93:2559–2565.
- Lan J et al. Meta-analysis of the effect and safety of berberine in the treatment of type 2 diabetes mellitus, hyperlipemia and hypertension. Journal of Ethnopharmacology. 2015;161:69–81.
- Dong H et al. Berberine in the treatment of type 2 diabetes mellitus: a systemic review and meta-analysis. Evidence-Based Complementary and Alternative Medicine. 2012:591654.
- Yan HM et al. Efficacy of Berberine in Patients with Non-Alcoholic Fatty Liver Disease. PLOS ONE. 2015;10:e0134172.
- Zhang X et al. Modulation of gut microbiota by berberine and metformin during the prevention of high-fat diet-induced obesity in rats. Scientific Reports. 2015;5:14405.
- Guo Y et al. Repeated administration of berberine inhibits cytochromes P450 in humans. European Journal of Clinical Pharmacology. 2012;68:213–217.
- Shi R et al. Renal vectorial transport of berberine mediated by organic cation transporter 2 (OCT2) and multidrug and toxin extrusion proteins 1 (MATE1) in rats. Biopharmaceutics & Drug Disposition. 2018;39:47–58.
- Shi R et al. Organic cation transporter and multidrug and toxin extrusion 1 co-mediated interaction between metformin and berberine. European Journal of Pharmaceutical Sciences. 2019;127:282–290.
- Ma SR et al. Berberine treats atherosclerosis via a vitamine-like effect down-regulating Choline-TMA-TMAO production pathway in gut microbiota. Signal Transduction and Targeted Therapy. 2022;7:207.
- Koo SH et al. The CREB coactivator TORC2 is a key regulator of fasting glucose metabolism. Nature. 2005;437:1109–1111.
- Cantó C et al. AMPK regulates energy expenditure by modulating NAD+ metabolism and SIRT1 activity. Nature. 2009;458:1056–1060.
- Cani PD et al. Metabolic endotoxemia initiates obesity and insulin resistance. Diabetes. 2007;56:1761–1772.
- Wang Z et al. Gut flora metabolism of phosphatidylcholine promotes cardiovascular disease. Nature. 2011;472:57–63.
- Koeth RA et al. Intestinal microbiota metabolism of L-carnitine, a nutrient in red meat, promotes atherosclerosis. Nature Medicine. 2013;19:576–585.
- Cunningham D et al. Structural and biophysical studies of PCSK9 and its mutants linked to familial hypercholesterolemia. Nature Structural & Molecular Biology. 2007;14:413–419.
- Sabatine MS et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. New England Journal of Medicine. 2017;376:1713–1722.
- Cannon CP et al. Ezetimibe Added to Statin Therapy after Acute Coronary Syndromes. New England Journal of Medicine. 2015;372:2387–2397.
- Pan GY et al. The involvement of P-glycoprotein in berberine absorption. Pharmazie. 2002;57:211–213.
- PubChem. Berberine: molecular identity and formula.
- PubChem. Dihydroberberine: molecular identity and formula.
- NCCIH. Berberine and Weight Loss: What You Need To Know. Safety and evidence overview.