UCP1, UCP2 y UCP3: grasa marrón y transporte protónico — NutriFit
UCP1, UCP2 y UCP3: transporte protónico, termogénesis y límites de estimulación
Cómo UCP1 conecta ácidos grasos, gradiente protónico y calor; diferencias de UCP2/UCP3, medición del desacoplamiento y límites clínicos del frío, suplementos y células beige.
La respiración mitocondrial y la síntesis de ATP están unidas por un gradiente electroquímico, pero el acoplamiento no tiene que ser rígido. Parte de la energía puede disiparse cuando los protones regresan a través de la membrana interna. En adipocitos marrones y beige activados, UCP1 convierte esta vía en una fuente regulada de calor. Los nombres UCP2 y UCP3 indican parentesco proteico, no funciones idénticas: su participación en el metabolismo de sustratos, las señales redox y la respuesta celular requiere una consideración separada.
Para interpretar el significado clínico del desacoplamiento hay que distinguir transporte de membrana, función del adipocito y gasto energético de la persona. Más consumo de oxígeno en un cultivo no demuestra pérdida de peso; más captación de glucosa en PET no mide la potencia térmica del tejido. El recorrido comienza en la estructura del transportador y termina en esos límites de interpretación.
1. Del desacoplante químico a la termogénesis fisiológica
1.1. Respirar no implica producir una cantidad proporcional de ATP
Los estudios de fosforilación oxidativa de mediados del siglo XX, incluidos los de Loomis y Lipmann y después Lardy y Wellman, mostraron que la oxidación de sustratos y la formación de ATP pueden cambiar de modo distinto. Un desacoplante lipófilo de tipo ácido débil transporta protones evitando la ATP sintasa. La cadena respiratoria compensa la pérdida del gradiente mientras disponga de sustratos y oxígeno, pero disminuye la eficiencia energética.
La historia del 2,4-dinitrofenol (DNP) mostró la importancia médica de este principio. Su uso para adelgazar en los años treinta produjo toxicidad grave: el desacoplamiento químico no se limita al depósito deseado y el exceso de calor y la falta de ATP amenazan los órganos. La capacidad biológica de aumentar el gasto no basta para recomendar un tratamiento. UCP1 regulada difiere de una conductancia protónica sin control en localización, regulación y magnitud.
1.2. Acoplamiento quimiosmótico y termogenina
En el modelo quimiosmótico de Mitchell, la cadena respiratoria crea diferencias de potencial eléctrico y concentración de protones entre la matriz y el espacio intermembrana. Su retorno por la ATP sintasa permite fosforilar ADP. Una vía alternativa puede mantener la respiración destinando menos energía al ATP.
Los trabajos con mitocondrias de grasa marrón vincularon su conductancia especial con la proteína llamada termogenina, posteriormente UCP1. La unión de nucleótidos purínicos, los efectos de los ácidos grasos y el aislamiento del transportador distinguieron un mecanismo específico del daño de membrana. La clonación del gen confirmó su pertenencia a la familia de transportadores mitocondriales. Nicholls y Locke, y después Cannon y Nedergaard, revisaron esta secuencia experimental [2; 3].
1.3. La grasa marrón adulta cambió la pregunta
En 2009, tres estudios clínicos independientes de Cypess, van Marken Lichtenbelt y Virtanen y sus colaboradores demostraron depósitos marrones metabólicamente activos en adultos. Ya no era defendible que la grasa termogénica relevante existiera solo en lactantes y roedores. Esos trabajos no demostraron que el frío produzca una pérdida predecible de varios kilos en todas las personas [4; 5; 6].
UCP2 y UCP3 se habían descrito en 1997. La semejanza de secuencia sugirió un sistema general de consumo de energía, pero la biología posterior resultó más compleja. La ausencia de una pérdida típica de defensa frente al frío al eliminar estos genes y los experimentos de transporte impiden equipararlos a UCP1 [14; 15; 13].
2. Arquitectura del transportador y diferencias entre isoformas
2.1. SLC25: un sistema proteico móvil
UCP1 pertenece a SLC25, familia de transportadores de la membrana mitocondrial interna. Contiene tres repeticiones relacionadas y seis hélices transmembrana. Forman una cavidad central y elementos de compuertas accesibles desde la matriz o el espacio intermembrana. El motivo P–X–[D/E]–X–X–[K/R] participa en esta arquitectura, pero la secuencia no identifica por sí sola el sustrato transportado.
Los modelos de estos transportadores emplean redes de residuos cargados y cambios de conformación para explicar el acceso alternante a la cavidad. Es más útil que imaginar un agujero siempre abierto: UCP1 es un sistema regulado, no una rotura pasiva de la bicapa. Sin embargo, el trayecto exacto del protón y del anión de ácido graso en UCP1 activa no puede deducirse únicamente del parentesco con otras SLC25.
2.2. Qué mostraron las estructuras de 2023
Las estructuras por criomicroscopía electrónica de UCP1 humana revelaron las seis hélices, la cavidad central y las interacciones con nucleótidos purínicos. Jones y colaboradores estudiaron la inhibición por nucleótidos; Kang y Chen, su unión y la del DNP [8; 9].
El método tiene un límite: la estructura unida a un nucleótido muestra un estado estabilizado, no todo el ciclo dependiente de ácidos grasos de un adipocito vivo. No establece un único conducto protónico definitivo ni demuestra que el ácido graso expulse necesariamente al nucleótido. El mecanismo dinámico requiere mediciones funcionales junto con la estructura.
2.3. Distribución tisular y evolución
Proteína y gen
Contexto principal
Función mejor establecida
Lo que no se deduce automáticamente
UCP1 / SLC25A7
Adipocitos marrones y beige activados
Disipación regulada del gradiente dependiente de ácidos grasos y termogénesis sin temblor
Que detectar ARNm garantice un gran gasto energético corporal
UCP2 / SLC25A8
Células inmunitarias y otras; distribución proteica dependiente de las condiciones
Participación metabólica y transporte experimental de metabolitos C4
Que sea una termogenina ubicua o exclusivamente un canal protónico
UCP3 / SLC25A9
Principalmente músculo esquelético y otros contextos
Relación con metabolismo de ácidos grasos y adaptación a carga metabólica
Que activarla sea un método probado para adelgazar
Abundancia del transcrito, cantidad de proteína y actividad de transporte son medidas distintas. No están justificados porcentajes universales de UCP en la membrana ni factores iguales de amplificación metabólica entre tejidos. La regulación postranscripcional dificulta especialmente las conclusiones basadas solo en ARNm de UCP2.
La familia de transportadores es evolutivamente antigua y la especialización fisiológica de cada UCP cambió entre linajes animales. La pérdida de UCP1 funcional en cerdos ilustra que la adaptación al frío puede apoyarse en otras vías. Patrones de expresión, marcadores de linaje y proporciones de grasa marrón del ratón necesitan una salvedad de especie al aplicarse al ser humano.
3. Gradiente protónico, calor y medición respiratoria
3.1. Los signos importan más que una cifra llamativa
Definimos las diferencias como matriz menos espacio intermembrana: Δψ=ψm−ψi y ΔpH=pHm−pHi. Para trasladar un protón hacia la matriz:
Δp=Δψ−F2.303RTΔpH,ΔGH+,i→m=FΔp.
R es la constante de los gases, T la temperatura absoluta y F la constante de Faraday. A 37 °C, 2.303RT/F equivale aproximadamente a 61,5 mV por unidad de pH. La matriz suele ser eléctricamente negativa y más alcalina, de modo que ambos componentes favorecen el retorno protónico [1].
Por ejemplo, Δψ=−150 mV y ΔpH=0,5 dan Δp≈−181 mV. Es un cálculo didáctico, no un límite diagnóstico ni un estado obligatorio de todas las mitocondrias. Algunas publicaciones invierten el convenio de signos; no se comparan números sin definir la dirección.
El campo eléctrico se estima como ∣Δψ∣/d, siendo d el grosor de membrana. Sustituir el potencial eléctrico por todo Δp, que incluye el componente químico, es incorrecto. Tampoco se obtiene de aquí un umbral universal de ruptura de la membrana viva.
3.2. Fuga basal y vía regulada de UCP1
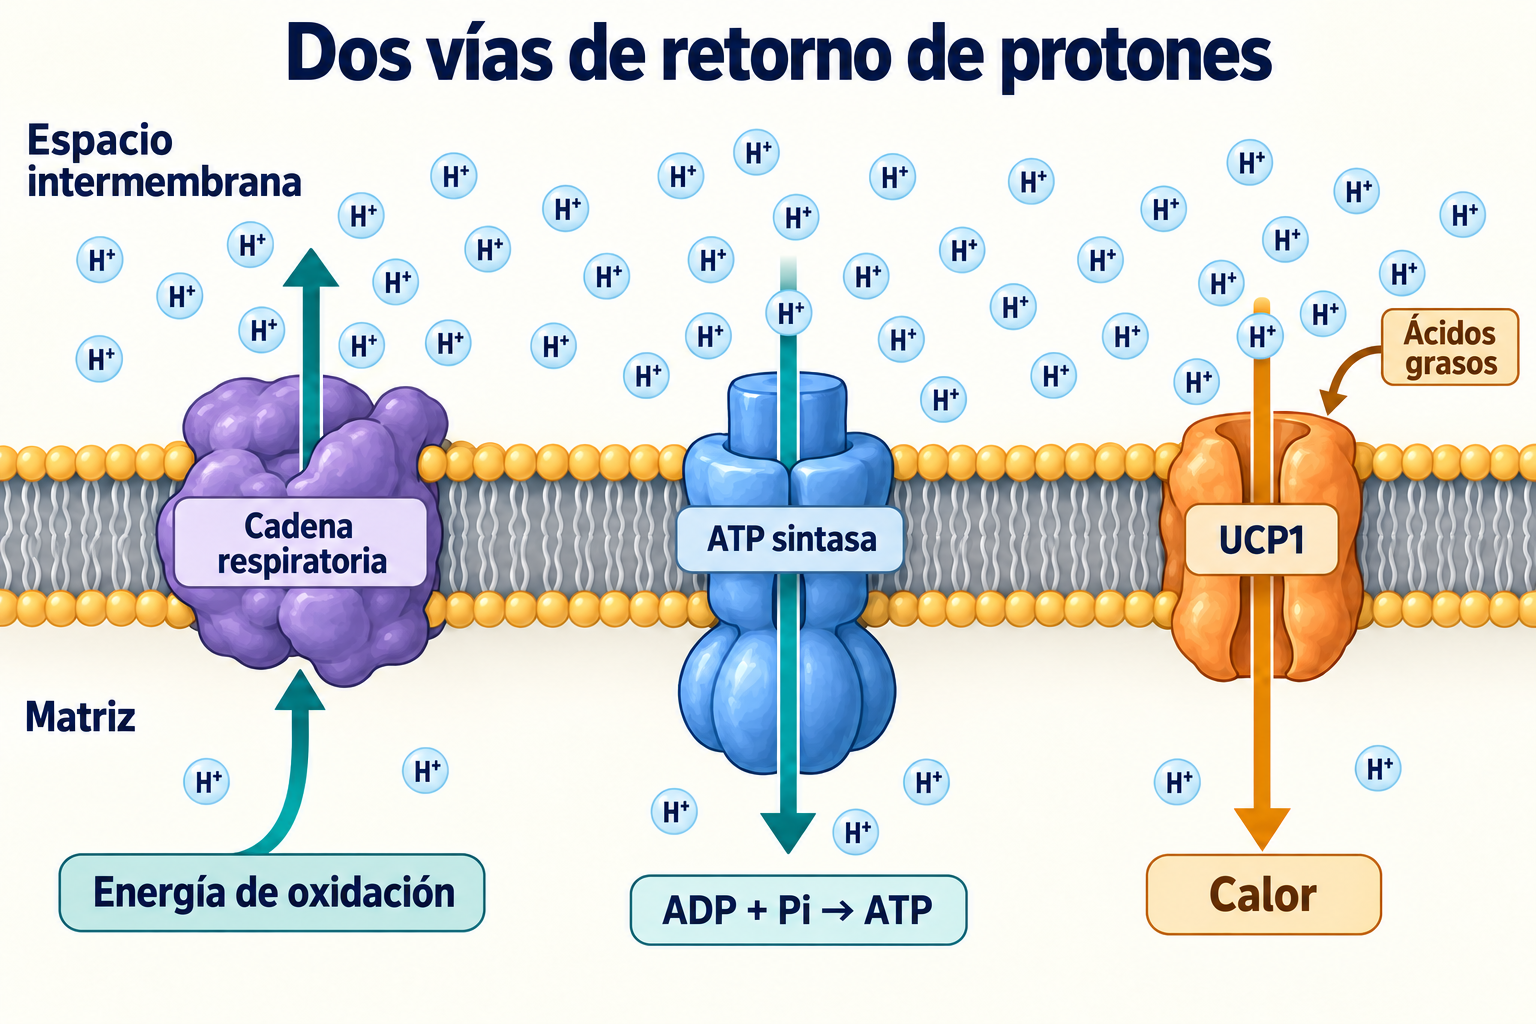
No todos los protones regresan por la ATP sintasa. El entorno lipídico y proteínas como el transportador ADP/ATP contribuyen, dependiendo del potencial, tejido y condiciones. Fuga describe un efecto energético, no necesariamente daño. No se puede asignar a este proceso un porcentaje universal del metabolismo basal.
UCP1 añade una conductancia regulada. Los ácidos grasos y nucleótidos la modifican y el sistema simpático la conecta con la necesidad de calor. En condiciones comparables, más retorno por UCP1 deja una fracción menor para el acoplamiento productivo.
La estequiometría de ATP sintasa no equivale al coste celular del ATP. Un anillo c de ocho subunidades transfiere ocho protones por vuelta y genera tres ATP: 8/3 protones por ATP catalítico. El transporte de fosfato y el intercambio ADP/ATP añaden costes energéticos. Por ello, «2,7 H⁺ por ATP» no representa el coste completo de fosforilación y exportación.
La cadena respiratoria crea el gradiente y dos vías paralelas lo consumen. Las flechas indican dirección, sin fijar una proporción entre ATP y calor. El adipocito sigue necesitando ATP para transporte, síntesis y mantenimiento.
3.3. Potencia disipativa y oxígeno
Si el flujo molar de protones por la vía disipativa es JH en mol/s:
Pdiss=JH∣FΔp∣.
Con corriente IH en amperios, la expresión equivalente es Pdiss=∣IHΔp∣, usando voltios. Describe flujo de energía libre; el balance térmico celular también incluye otras reacciones.
Reducir la contrapresión del gradiente suele acelerar la cadena respiratoria y la tasa de consumo de oxígeno (OCR), si hay combustible, oxígeno y capacidad de los complejos. Un desacoplamiento excesivo o la falta de sustrato rompe esta condición. OCR no tiene que subir con toda pérdida de potencial, y su incremento no prueba mitocondrias más saludables.
ATP/O disminuye con disipación adicional. Debe aclararse si O corresponde a un átomo de oxígeno o a O₂ y cómo se midió ATP. «ATP/O llega a cero» o «todo el adipocito deja de sintetizar ATP» no describen la termogénesis regulada habitual.
3.4. Qué miden la respirometría y Seahorse
Los estados Chance–Williams describen mitocondrias aisladas: estado inicial, adición de sustrato, respiración estimulada por ADP (estado 3) y tras consumirlo (estado 4). RCR=V3/V4 ayuda a evaluar el acoplamiento de una preparación concreta. No existe un RCR sano universal para todos los tejidos y protocolos; un estado desacoplado experimental no reproduce exactamente UCP1 fisiológica [27].
Paso del análisis celular
Inferencia útil
Límite
OCR basal
Consumo inicial de oxígeno
Suma respiración ligada a ATP, fuga y otros componentes
Oligomicina
La diferencia antes/después estima el componente ligado a ATP
Inhibir ATP sintasa cambia el potencial; el residuo no es específico de UCP1
FCCP titulado
Respiración máxima con condiciones adecuadas
Dosis insuficiente/excesiva y falta de combustible distorsionan el resultado
Rotenona + antimicina A
Consumo residual no mitocondrial
Requiere controles de toxicidad, fondo y normalización
Número y estado celular, normalización por proteína o ADN, sustratos y duración deben ser comparables. ECAR mide acidificación extracelular y sin cálculo adicional no equivale solo a glucólisis. Para atribuir el cambio a UCP1 sirven eliminación y rescate del gen, controles de ácidos grasos y nucleótidos, potencial y, cuando sea posible, corriente directa de membrana. Un aumento múltiple de OCR por sí solo no identifica la proteína.
4. Cómo se activa UCP1
4.1. El freno nucleotídico depende de la forma química
ATP, ADP, GTP y GDP inhiben UCP1 en sistemas bioquímicos. Su unión limita la conductancia. Sin embargo, ATP celular total no equivale a inhibidor disponible: importan las formas libres o unidas a Mg²⁺, el pH, el compartimento y el entorno local [8].
«Mucho ATP significa UCP1 siempre cerrada» es demasiado simple. En el adipocito activado, los cambios de lipólisis y disponibilidad de ácidos grasos coexisten con la regulación nucleotídica. Captar una estructura inhibida no elimina la capacidad fisiológica de activar rápidamente la producción de calor.
4.2. Ácido graso: participante transportado o cofactor retenido
Los ácidos grasos de cadena larga son necesarios para la actividad característica de UCP1. En el modelo del ciclo, RCOOH protonado atraviesa la fase lipídica hacia la matriz y libera el protón. RCOO⁻ retorna mediante el transportador. El ciclo neto lleva un protón al interior aunque la proteína transporte directamente el anión [10; 11].
Otros modelos mantienen el ácido graso asociado a la proteína: el carboxilo participa en la transferencia protónica y la cola hidrófoba restringe el desplazamiento completo. Cofactor no significa aquí que UCP1 se convierta en un poro acuoso abierto convencional.
Los experimentos electrofisiológicos de Fedorenko en la membrana interna de mitocondrias marrones relacionaron directamente la corriente UCP1 con los ácidos grasos y su grupo aniónico. Refinaron los modelos anteriores, pero no autorizan a dibujar una cadena arbitraria de residuos como ruta definitivamente demostrada de cada protón [7].
Ambas interpretaciones dependen del ácido graso libre y disponible. Albúmina y FABP lo unen y cambian la concentración activa; los lípidos totales no la miden. Las concentraciones en membranas reconstruidas no se convierten directamente en una dosis de activador oral.
4.3. Señal simpática y lipólisis
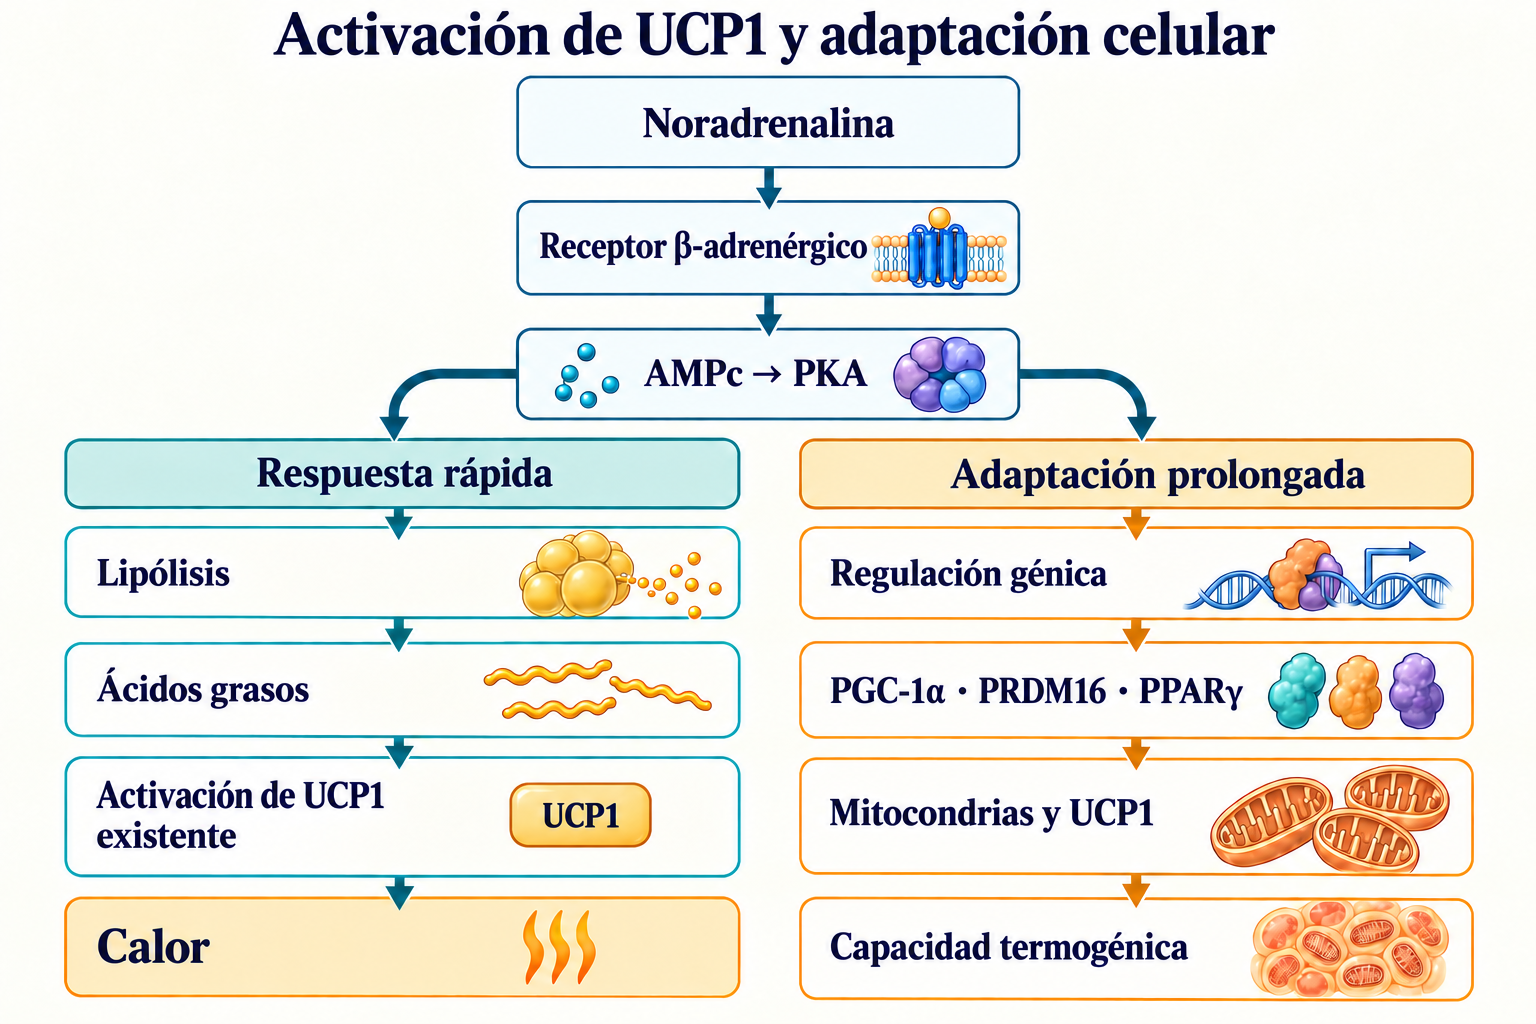
El enfriamiento cutáneo inicia procesamiento termorregulador central y salida simpática hacia tejido adiposo. La noradrenalina activa receptores β; Gs, adenilato ciclasa, AMPc y PKA llevan la señal a la gota lipídica. β3 es importante en roedores, pero BAT humana no se describe solo así: datos primarios indican una contribución relevante de β2 [31].
PKA cambia la regulación de perilipina PLIN1 y lipasa sensible a hormonas HSL. Liberar el coactivador ABHD5/CGI-58 favorece ATGL: triacilglicerol pasa a diacilglicerol, HSL continúa y la monoacilglicerol lipasa completa el proceso. TG → DAG → MAG → glicerol y ácidos grasos resume la secuencia; los sitios de fosforilación concretos dependen de proteína y especie.
Los ácidos grasos sirven como combustible de oxidación y participantes en la activación UCP1. También llegan sustratos desde la circulación; la gota no es la única fuente. Activar rápido un transportador existente difiere de aumentar más lentamente su cantidad y la masa mitocondrial.
La bifurcación separa activación funcional de cambio de programa celular. PGC-1α, PRDM16 y PPARγ cooperan, no son enzimas consecutivas. La figura no fija duración universal ni implica que todo aumento de AMPc garantice aparición de células beige.
5. Células marrones y beige: cambiar el programa
5.1. Funciones similares, orígenes diferentes
Los adipocitos marrones suelen contener numerosas gotas lipídicas pequeñas y mitocondrias; su irrigación aporta combustible y distribuye calor. Células beige aparecen en ciertos depósitos blancos ante estímulos determinados, por diferenciación de precursores o cambios en células existentes. Al retirar el estímulo, el fenotipo puede debilitarse conservando elementos de memoria de activación [20].
Myf5, Pax7 y otros marcadores permitieron investigar linajes en ratones, pero «todo marrón Myf5⁺, todo beige Myf5⁻» es excesivo. Zic1/Lhx8 y CD137/TMEM26/TBX1/CITED1 son paneles útiles en modelos concretos, no pruebas clínicas universales de depósitos humanos. Origen, rasgos moleculares y función juntos identifican mejor la célula que un marcador único.
5.2. PRDM16, PGC-1α y EBF2 tienen tareas diferentes
PRDM16 interacciona con socios transcripcionales como C/EBPβ y PPARγ y ayuda a organizar la identidad termogénica. Cambiar los programas de grasa marrón y músculo esquelético demostró su papel causal en modelos [17]. Modificar una proteína en el organismo no crea automáticamente un depósito funcional nuevo.
PGC-1α, producto de PPARGC1A, es un coactivador, no un factor que se una independientemente al ADN. Mediante PPAR, ERR y factores respiratorios nucleares coordina metabolismo oxidativo y biogénesis mitocondrial, incluido TFAM. Puigserver describió su papel inducible por frío [18]. Más transcrito no establece una duplicación fija de mitocondrias ni un incremento uniforme de calor.
EBF2 contribuye a la accesibilidad de cromatina y a las interacciones con complejos de remodelación, incluido SWI/SNF. La red requiere concordancia entre identidad celular, transportador, suministro de sustratos e inervación. Nombrar una diana no valida un suplemento que pretenda controlar toda la red.
5.3. SIRT1 y acetilación de PPARγ
En los experimentos de Qiang, la desacetilación de PPARγ dependiente de SIRT1, incluidos Lys268 y Lys293, modificó interacciones reguladoras y favoreció remodelación de grasa blanca hacia un fenotipo marrón. Es un vínculo específico entre modificación proteica y programa celular, no evidencia de conversión irreversible tras activar sirtuinas [23].
SIRT1 utiliza NAD⁺, pero elevar el cofactor en sangre no implica reproducir el resultado en grasa. Importan compartimentos, disponibilidad enzimática y contexto de PPARγ. La relación entre cofactores y límites clínicos se desarrolla en niacina y seguridad de la vitamina B3.
5.4. Los polimorfismos no definen un protocolo personal
Se estudian UCP1 −3826A>G (rs1800592), UCP2 −866G>A (rs6593660) y UCP3 −55C>T (rs1800849). Sus asociaciones con expresión, obesidad o metabolismo glucídico varían según población, condiciones y diseño. Un promotor puede resultar biológicamente interesante sin constituir diagnóstico individual ni pérdida inmutable de capacidad termogénica.
No hay un algoritmo validado para prescribir temperatura, duración del frío o berberina por estos SNP. Asociar UCP2 con diabetes no demuestra que una persona deba potenciar o inhibir la proteína. Tampoco las asociaciones de UCP3 permiten prometer protección de la resistencia a insulina. La genética formula preguntas de investigación; no sustituye el riesgo clínico.
6. UCP2 y UCP3: metabolismo más allá de una termogenina universal
6.1. Por qué el nombre familiar puede confundir
UCP2 y UCP3 no reproducen la especialización fisiológica de UCP1 abundante y activa en grasa marrón. Cantidad, regulación y tareas difieren; los fenotipos de eliminación génica no muestran una pérdida simple de la termogénesis principal sin temblor. Ausencia de un fenotipo tampoco significa ausencia de función: compensación, dieta, temperatura de alojamiento y tipo celular alteran resultados [13].
Para UCP2 son importantes los datos directos de transporte. Vozza demostró transporte de metabolitos C4, incluidos malato, oxaloacetato y aspartato, vinculado al intercambio de fosfato y protones [30]. Añade una función de distribución de sustratos carbonados entre rutas oxidativas. Reducir UCP2 a un canal protónico débil omite biología sustancial.
6.2. Desacoplamiento leve y especies reactivas de oxígeno
Parte de la formación de especies reactivas de oxígeno depende de potencial, reducción de transportadores y dirección electrónica. Con ciertos sustratos, un gradiente alto favorece transporte inverso al complejo I; reducir ligeramente la fuerza impulsora puede disminuir mucho esa fuente de superóxido. La dependencia no es igual entre sitios respiratorios y estados metabólicos [12].
Por tanto, «10–15 mV eliminan 70–90% de radicales sin coste» no es universal. Una cifra de una preparación no define normalidad celular; el signo negativo del potencial también exige una comparación cuidadosa. El estrés oxidativo depende de eliminación, localización y daño a dianas, además de producción.
Se han investigado modelos de retroalimentación con ácidos grasos y productos de peroxidación como 4-HNE para conductancia dependiente de UCP. Condiciones, especificidad y escala fisiológica importan. Las especies reactivas también señalizan; detectarlas menos no garantiza mejor defensa inmunitaria o longevidad. Desacoplamiento leve es un concepto mecanístico, no un régimen preventivo listo.
6.3. Aniones lipídicos: datos e hipótesis
UCP3 se relaciona con el desajuste entre aporte de ácidos grasos y capacidad oxidativa. Exportar aniones y productos de peroxidación se propone como protección ante carga lipídica. No debe describirse como eliminación selectiva universalmente probada de todos los hidroperóxidos de la matriz [13].
La peroxidación afecta fases de membrana; no todos sus productos son aniones libres hidrosolubles en matriz. La membrana interna es poco permeable a muchas sustancias cargadas, pero contiene transportadores específicos. Cada sustrato propuesto exige demostrar transporte, dirección y relevancia celular. El transporte C4 de UCP2 debe separarse de hipótesis sobre aniones lipídicos de UCP3.
6.4. La célula β y el macrófago usan mitocondrias de modo distinto
La secreción de insulina estimulada por glucosa incluye:
Glucosa→metabolismo→↑ATP/ADP→cierre de KATP→despolarizacioˊn→Ca2+→exocitosis de insulina.
Los cambios mitocondriales pueden influir en la secuencia. Zhang vinculó UCP2 a regulación negativa de la secreción en modelos [16]. Contexto celular, sustratos, señales redox y carga crónica impiden reducir todo a desviar protones. Un único estudio de eliminación génica no justifica inhibir UCP2 para tratar diabetes.
En macrófagos, UCP2 participa en cambios metabólicos y redox que afectan activación y defensa. «Más UCP2 significa M2, menos significa M1» no representa la diversidad inmunitaria. El estallido respiratorio bactericida también implica NADPH oxidasas, no solo potencial mitocondrial. Un efecto antioxidante aislado no establece acción antiinflamatoria general en el organismo.
7. Termogénesis humana y límites de estimulación
7.1. Depósitos marrones e interpretación de PET
En adultos suele detectarse tejido termogénico cervical y supraclavicular, además de depósitos paravertebrales, mediastínicos y otros. Su composición es heterogénea y depende de edad, temperatura, alimentación y método. El mapa anatómico no implica igual masa activa en cada persona [4; 6].
PET-TC con ¹⁸F-FDG registra captación de un análogo de glucosa. Identifica tejido activable por frío, pero no equivale a consumo de oxígeno o calor. Insulina, perfusión y disponibilidad de sustratos afectan la captación; los ácidos grasos pueden alimentar termogénesis sin aumento proporcional de FDG. Evaluar energía requiere métodos adicionales, como calorimetría indirecta y oxidación tisular.
La grasa marrón recibe glucosa y lípidos circulantes. LPL libera ácidos grasos de lipoproteínas ricas en triglicéridos; transporte y oxidación sostienen el calor. Bartelt mostró un aporte importante de BAT al aclaramiento de triglicéridos en ratones; Chondronikola asoció activación BAT con metabolismo energético y glucídico humano [25; 26]. Especie y condiciones son fundamentales.
Ni estos datos ni asociaciones inversas BAT–índice de masa corporal garantizan «150–300 kcal diarias» o «4–8 kg al año» lineales. Compensación del apetito, actividad y adaptación modifican el balance. Asociaciones con salud metabólica tampoco prueban que BAT explique por completo las diferencias entre grupos.
7.2. Una diana alimentaria no es un resultado clínico
Sustancia
Mecanismo discutido
Límite de evidencia
Capsaicina y capsinoides
Señales sensoriales TRPV1 y respuesta simpática
Estudios humanos pequeños no establecen tratamiento sostenido de obesidad; extracto no equivale a chile
Berberina
AMPK, programas oxidativos, PGC-1α/PRDM16
Zhang 2014 estudió modelos experimentales, no creación probada de depósitos beige en pacientes
Mentol y afines
TRPM8 sensible al frío
Activar el receptor no garantiza imitación segura del enfriamiento ni adelgazamiento humano
EGCG y cafeína
Varias dianas metabólicas y de señalización
No están probadas las simplificaciones de inhibición prolongada de COMT en BAT y bloqueo directo de PDE con dosis clínicas
Resveratrol y pterostilbeno
Interacciones experimentales con AMPK/SIRT1 y transcripción
Desacetilar PPARγ no demuestra equivalencia entre suplemento y activación enzimática ni conversión beige sostenida
Ácido ursólico
IGF-1/Akt y cambios de músculo/grasa en modelos
Datos animales no establecen eficacia termogénica clínica
Los estudios humanos de capsinoides examinan gasto inducido por frío y reclutamiento de BAT, pero muestras y desenlaces sustitutos limitan extrapolar a peso a largo plazo [33]. Berberina 2014 utilizó células y animales [24]. Responden preguntas distintas y no validan sinergia de administración conjunta.
El origen alimentario no demuestra seguridad cardiovascular de una mezcla concentrada. Cafeína puede aumentar palpitaciones y alterar sueño; extractos de té verde tienen límites propios. Composición e interacciones farmacológicas también importan. La comparación entre bebida y producto concentrado se desarrolla en té verde, polifenoles y seguridad.
Mirabegrón es un ejemplo de investigación adrenérgica, pero los resultados de roedores y humanos difieren. Dosis, selectividad y efectos cardiovasculares limitan la aplicación [31]. Mayor termogénesis experimental no justifica automedicarse para perder peso.
7.3. Músculo, corazón y tiroides
El ejercicio modifica señales metabólicas musculares. Boström vinculó PGC-1α, FNDC5 e irisina liberada a programas semejantes a grasa marrón en modelos [19]. No demuestra que toda la utilidad del ejercicio provenga de convertir grasa humana en beige. Enzimas escinden FNDC5, mientras PGC-1α regula expresión; dibujar a PGC-1α cortándolo directamente sería incorrecto.
ANP y BNP pueden activar programas lipolíticos y termogénicos por NPR-A/guanilato ciclasa, GMPc, PKG y p38 MAPK. Bordicchia mostró esta vía en adipocitos de ratón y humanos [21]. Es otra línea reguladora, no explicación suficiente de caquexia cardíaca ni evidencia de beneficio clínico por BNP elevado.
Meteorin-like (METRNL) participa en modelos de interacción inmunidad–grasa durante adaptación termogénica [22]. Debe distinguirse experimento causal animal, marcador circulante y efecto terapéutico establecido. La comunicación hormonal no convierte todos sus componentes en dianas seguras de potenciación.
T₃ favorece respuestas transcripcionales y adrenérgicas termogénicas. DIO2 local transforma T₄ en T₃ y cambia la disponibilidad intracelular. Es regulación fisiológica, no motivo para inducir tirotoxicosis sistémica: el exceso afecta corazón, huesos y músculos mucho más allá de BAT.
7.4. Diabetes, frío y ácidos biliares
Hanssen 2015: la sensibilidad a insulina aumentó alrededor del 43% tras aclimatación en ocho pacientes; predominó GLUT4 muscular, con pequeño aporte de BAT [28]. No demuestra un efecto GLUT4/AMPK en adipocitos marrones: AMPK no explicaba el resultado del estudio.
Otro estudio pequeño de 2021 no mejoró sensibilidad tras diez días de frío suave sin temblor manifiesto en nueve pacientes [32]. Diferencias de protocolo y actividad muscular mantienen abierta la pregunta; ninguno reemplaza ensayos comparativos de tratamiento diabético.
Los ácidos biliares señalizan además de digerir grasas. Watanabe vinculó TGR5/GPBAR1 a AMPc, activación tiroidea local dependiente de DIO2 y gasto energético [29]. La microbiota transforma ácidos primarios en secundarios, modificando el conjunto y los efectos receptores. Coexisten otros receptores y tejidos, por lo que no se supone activación selectiva de BAT sin efectos sistémicos.
El mecanismo no confirma tratar diabetes con berberina o fibra soluble específicamente por UCP1 ni convierte tomar ácidos biliares por cuenta propia en estrategia termogénica. Las dianas requieren evaluación humana de eficacia, distribución y efectos adversos.
8. Significado práctico y límites del seguimiento
8.1. Qué aporta el mecanismo
UCP1 demuestra que menor eficiencia de acoplamiento puede ayudar fisiológicamente a mantener temperatura. UCP2/UCP3 ilustran tareas diferentes; señales redox y uso de sustratos no se reducen a calorías quemadas. La tabla 2.3 resume diferencias. Repetir una matriz con porcentajes no sustentados y activadores idénticos las ocultaría.
Actividad física, dieta y tratamiento metabólico se valoran por resultados clínicos propios. Ejercicio puede cambiar miocinas y programas, pero su beneficio no exige demostrar aumento de UCP1. Tolerar frío tampoco mide capacidad termogénica individual: temblor, vasos, ropa y aclimatación alteran sensaciones.
8.2. Por qué no hay un protocolo multimodal listo
Ni capsaicina, berberina, EGCG/cafeína, resveratrol y mentol juntos, ni su combinación con frío, están validados como protocolo clínico único UCP1. Dosis y duraciones de experimentos separados no forman un régimen probado. Unidades SHU tampoco dan la dosis exacta de capsaicina de una cápsula sin analizar composición.
El frío activa respuestas simpáticas y vasculares. Exposición intensa e inmersión difieren de aclimatación suave controlada. En enfermedad cardiovascular, alteración de sensibilidad y otros cuadros importa más el riesgo individual que la promesa mecanística. Dolor torácico, debilidad intensa, confusión y pérdida de control del temblor exigen detener la exposición y evaluación médica. No se establece una temperatura doméstica ni duración terapéutica universales.
Medida
Qué evalúa
Qué no mide
Glucosa, HbA1c
Metabolismo glucídico si está indicado
Actividad específica UCP1
Triglicéridos y ApoB
Metabolismo lipídico y riesgo cardiovascular
Aclaramiento aislado de grasa marrón
Insulina basal, HOMA-IR
Estimación indirecta en contextos adecuados
Sensibilidad tisular directa o potencia BAT
TSH y T₄ libre
Función tiroidea por indicación
DIO2 local; cribado amplio de T₃ no prueba conversión beige
Pulso y presión
Hemodinámica y tolerancia
Eficacia del desacoplamiento
PET-TC
Preguntas especializadas clínicas o de investigación
Cribado habitual de grasa marrón débil
Peso, HbA1c o triglicéridos pueden mejorar por causas múltiples. Estas pruebas no atribuyen cambio solo a UCP. Intervenciones justificadas requieren resultados reproducibles y seguridad; detalle molecular no los sustituye.
Método y limitaciones
Esta revisión científica narrativa del original suministrado se terminó el 8 de octubre de 2026. Conserva temas y secuencia mecanística y aclara extrapolaciones discutibles de células/animales a humanos. La verificación dirigida de trabajos primarios abordó afirmaciones clave de transporte y clínica y corrigió registros bibliográficos identificados. No es búsqueda sistemática de toda la literatura, evaluación GRADE formal ni revisión externa por pares. Las citas entre corchetes corresponden a la lista común; las imágenes explican mecanismos sin escala cuantitativa.
Preguntas frecuentes
¿UCP1 detiene la síntesis de ATP?
Ofrece una vía paralela de consumo del gradiente. La célula necesita ATP y la fracción destinada al calor depende de regulación y sustratos.
¿UCP2/UCP3 hacen lo mismo que UCP1?
No. Sus tareas tisulares difieren: UCP2 transporta metabolitos C4 experimentalmente y UCP3 se relaciona con adaptación lipídica. No son termogeninas universales demostradas.
¿BAT activa en PET prueba gran gasto calórico?
FDG muestra captación de un análogo de glucosa, no medición directa de calor u oxidación. No predice pérdida individual de peso.
¿Los SNP UCP guían frío o suplementos?
No hay algoritmo validado que asigne temperatura, duración o nutracéuticos por estos variantes. Asociación poblacional no es prescripción personal.
¿Hay una mezcla probada para producir grasa beige?
Capsaicina, berberina, EGCG/cafeína, resveratrol y mentol no forman un protocolo clínico validado. Mecanismos y origen alimentario no establecen eficacia o seguridad conjunta.