
UCP1, UCP2 та UCP3: протонний транспорт, термогенез і межі стимуляції
Як UCP1 пов’язує жирні кислоти, протонний градієнт і тепло; відмінності UCP2/UCP3, вимірювання роз’єднання та клінічні межі холоду, добавок і бежевіння.
Як UCP1 пов’язує жирні кислоти, протонний градієнт і тепло; відмінності UCP2/UCP3, вимірювання роз’єднання та клінічні межі холоду, добавок і бежевіння.
Мітохондріальне дихання та синтез АТФ пов’язані електрохімічним градієнтом, але цей зв’язок не обов’язково жорсткий. Частина енергії розсіюється під час повернення протонів через внутрішню мембрану. У бурих та активованих бежевих адипоцитах UCP1 перетворює цей шлях на регульоване джерело тепла. Назви UCP2 і UCP3 відображають спорідненість білків, а не однакову функцію: їхню участь в обміні субстратів, редокс-сигналах і клітинній відповіді слід розглядати окремо.
Клінічний зміст роз’єднання потребує розрізнення мембранного транспорту, роботи жирової клітини та витрат енергії людини. Більше споживання кисню в культурі не доводить схуднення; захоплення глюкози на ПЕТ не вимірює теплову потужність тканини. Механізм простежується від будови переносника до цих меж тлумачення.
Дослідження окисного фосфорилювання середини XX століття, зокрема Loomis і Lipmann, а згодом Lardy і Wellman, показали, що окиснення субстратів та утворення АТФ можуть змінюватися неоднаково. Ліпофільна слабка кислота переносить протони в обхід АТФ-синтази. Дихальний ланцюг компенсує втрату градієнта за наявності палива й кисню, але енергетична ефективність зменшується.
Історія 2,4-динітрофенолу (DNP) зробила принцип медично наочним. Його застосування для схуднення у 1930-х спричиняло тяжку токсичність: хімічне роз’єднання не обмежується потрібним депо, а надмірне тепло і дефіцит АТФ загрожують органам. Біологічної можливості підвищити витрати енергії недостатньо для лікувальної рекомендації. Регульований UCP1 відрізняється від неконтрольованої протонної провідності локалізацією, керуванням і масштабом.
У моделі Mitchell дихальний ланцюг створює різниці електричного потенціалу та концентрації протонів між матриксом і міжмембранним простором. Повернення через АТФ-синтазу забезпечує фосфорилювання АДФ. Інший переносник дозволяє диханню тривати, спрямовуючи меншу частку енергії в АТФ.
Досліди з мітохондріями бурого жиру пов’язали особливу провідність з термогеніном, згодом UCP1. Зв’язування пуринових нуклеотидів, вплив жирних кислот і виділення білка відрізнили специфічний механізм від ушкодження мембрани. Клонування гена закріпило належність до мітохондріальних переносників. Огляди Nicholls і Locke та Cannon і Nedergaard описують цю експериментальну послідовність [2; 3].
У 2009 році три незалежні клінічні роботи Cypess, van Marken Lichtenbelt і Virtanen з колегами підтвердили метаболічно активні депо у дорослих. Теза, що суттєвий термогенний жир є лише в немовлят і гризунів, стала неспроможною. Водночас роботи не довели передбачуваної втрати кілограмів від холоду в кожної людини [4; 5; 6].
UCP2 і UCP3 описали 1997 року. Подібність послідовностей породила уявлення про загальну систему спалювання енергії, але біологія виявилася складнішою. Відсутність типової втрати холодового захисту після вимкнення цих генів та транспортні експерименти не дозволяють прирівнювати їх до UCP1 [14; 15; 13].
UCP1 належить до SLC25, переносників внутрішньої мітохондріальної мембрани. Три споріднені повтори та шість трансмембранних спіралей формують центральну порожнину й елементи затворів, доступні з боку матриксу або міжмембранного простору. Мотив P–X–[D/E]–X–X–[K/R] бере участь у цій архітектурі, але сам не визначає субстрат.
Моделі переносників пояснюють почерговий доступ мережами заряджених залишків та змінами конформації. Це точніше за образ постійно відкритої дірки: UCP1 — регульована транспортна система, а не пасивний розрив бішару. Проте конкретний шлях протона і жирнокислотного аніона в активному білку не випливає лише зі спорідненості з іншими SLC25.
Кріоелектронні структури людського UCP1 безпосередньо показали шість спіралей, центральну порожнину та взаємодії з нуклеотидами. Jones досліджував нуклеотидне гальмування, Kang і Chen — зв’язування нуклеотидів та DNP [8; 9].
Нуклеотид-зв’язана структура відображає стабілізований стан, а не весь жирнокислотно-залежний цикл у живому адипоциті. Вона не доводить єдиного остаточного протонного проводу або обов’язкового витіснення нуклеотиду жирною кислотою. Динамічний механізм потребує функціональних вимірювань разом зі структурою.
| Білок і ген | Основний контекст | Найкраще встановлена роль | Що не випливає автоматично |
|---|---|---|---|
| UCP1 / SLC25A7 | Бурі та активовані бежеві адипоцити | Регульоване жирнокислотно-залежне розсіювання градієнта й термогенез без тремтіння | Що наявність мРНК гарантує великі витрати енергії організму |
| UCP2 / SLC25A8 | Імунні та інші клітини; білковий розподіл залежить від умов | Метаболічна участь, експериментально показаний транспорт C4-метаболітів | Що це повсюдний термогенін або лише протонний канал |
| UCP3 / SLC25A9 | Передусім скелетні м’язи та інші тканинні контексти | Зв’язок з обміном жирних кислот та адаптацією до навантаження | Що активація є доведеним способом схуднення |
Транскрипт, кількість білка та активність транспорту — різні величини. Універсальні відсотки мембранного UCP й однакові коефіцієнти посилення обміну не обґрунтовані. Посттранскрипційна регуляція особливо ускладнює висновки лише за мРНК UCP2.
Родина переносників еволюційно давня, а спеціалізація UCP змінювалася між лініями тварин. Втрата функціонального UCP1 у свиней нагадує про інші механізми холодової адаптації. Мишачі схеми експресії, маркери походження та частки бурого жиру не переносять на людину без видової застереженості.
Визначимо різниці як «матрикс мінус міжмембранний простір»: і . Для перенесення протона всередину:
— газова стала, — абсолютна температура, — стала Фарадея. За 37 °C коефіцієнт приблизно дорівнює 61,5 мВ на одиницю pH. Матрикс зазвичай електрично негативний і лужніший, тож обидва компоненти сприяють поверненню протона [1].
При мВ і маємо мВ. Це навчальний розрахунок, а не діагностична межа чи обов’язковий стан усіх мітохондрій. Іноді знак визначають навпаки; без напрямку цифри не порівнюють.
Електричне поле оцінюють як , де — товщина мембрани. Підставляти весь з хімічним компонентом замість електричного потенціалу неправильно. Розрахунок не встановлює універсальної межі пробою живої мембрани.
Протони повертаються не тільки через АТФ-синтазу. Внесок роблять ліпідне оточення й білки, зокрема переносник АДФ/АТФ; величина залежить від потенціалу, тканини та досліду. «Витік» описує енергетичний ефект, не обов’язково пошкодження. Єдиного відсотка базального обміну для всіх клітин немає.
UCP1 додає регульовану провідність. Її змінюють жирні кислоти й нуклеотиди, а симпатична система узгоджує з потребою в теплі. За інших рівних умов більше повернення через UCP1 залишає меншу частку для продуктивного спряження.
Стехіометрія АТФ-синтази не дорівнює клітинній ціні АТФ. Оберт восьмисубодиничного c-кільця переносить вісім протонів і синтезує три АТФ: протона на каталізовану АТФ. Доставка фосфату та обмін АДФ/АТФ додають витрати. «2,7 H⁺ на АТФ» не є повною ціною фосфорилювання й експорту.
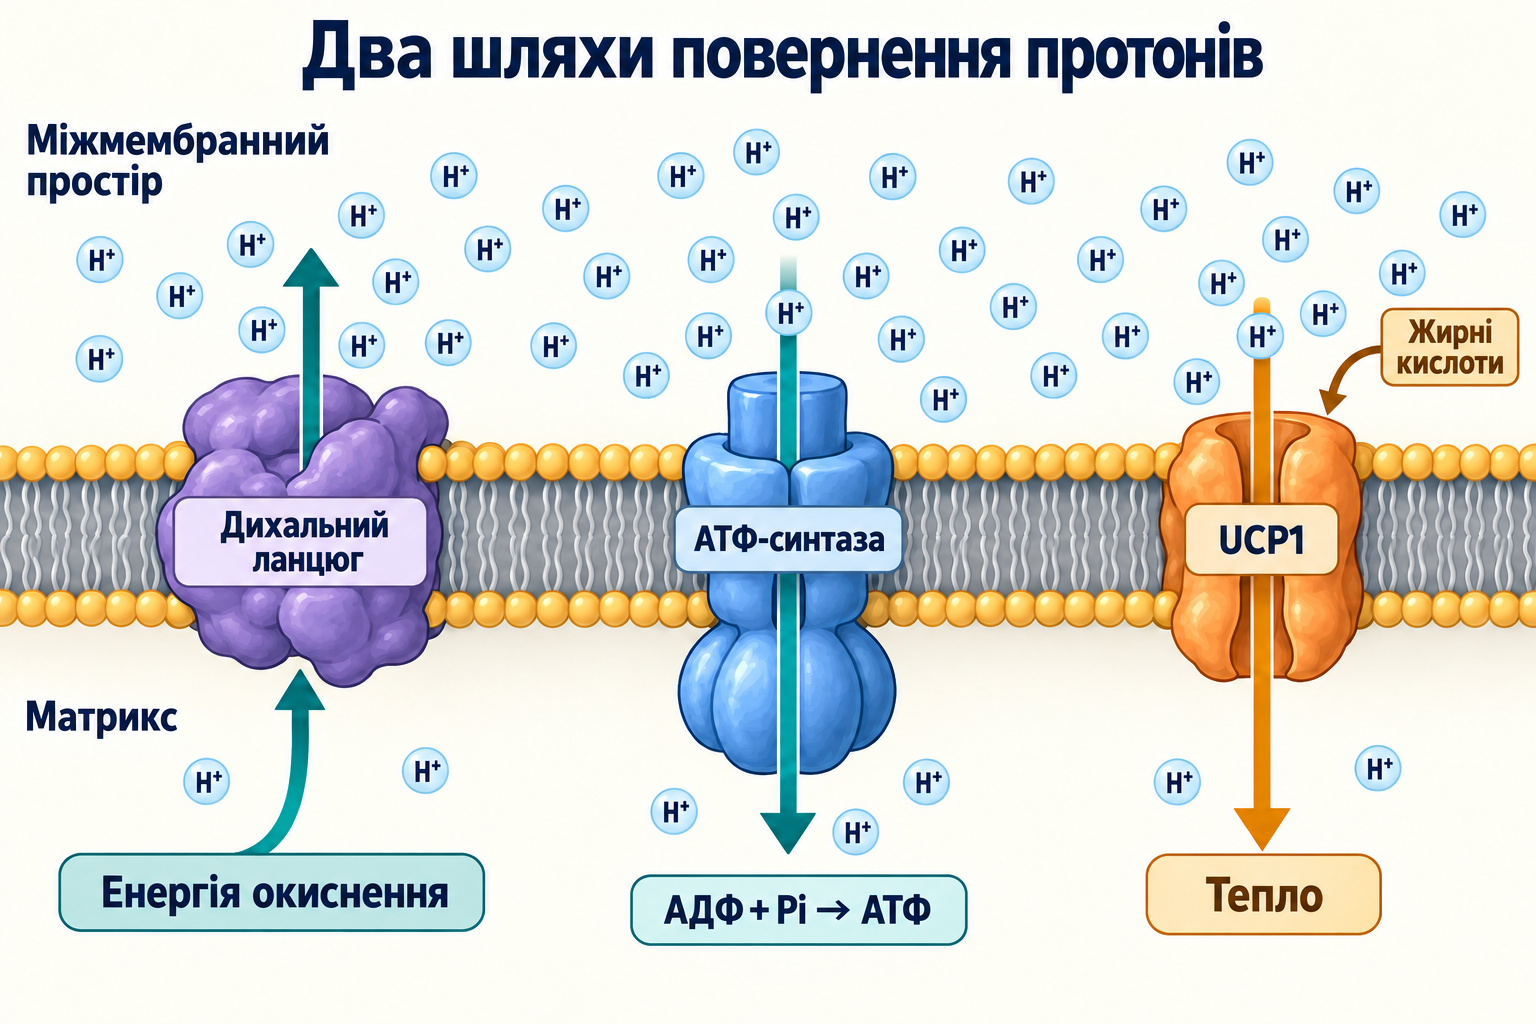
Ланцюг створює градієнт, а паралельні шляхи витрачають його. Стрілки задають напрямок, а не співвідношення АТФ і тепла. Адипоцит зберігає потребу в АТФ для транспорту, синтезу й підтримання клітини.
Для молярного потоку протонів у моль/с:
Для струму в амперах еквівалент — , потенціал у вольтах. Це потік вільної енергії; тепловий баланс клітини включає інші реакції.
Зменшення протитиску градієнта часто прискорює ланцюг і споживання кисню (OCR), коли є паливо, кисень і потужність комплексів. Надмірне роз’єднання або брак субстратів порушує умову. OCR не обов’язково зростає за будь-якої втрати потенціалу, а зростання не доводить оздоровлення мітохондрій.
АТФ/O знижується з додатковим розсіюванням. Слід визначити, чи O означає атом кисню або O₂, та як вимірювали АТФ. «АТФ/O дорівнює нулю» і «весь адипоцит припиняє синтез АТФ» не описують звичайний регульований термогенез.
Стани Chance–Williams описують ізольовані мітохондрії: вихідний стан, подачу субстрату, стимуляцію АДФ (стан 3) і дихання після його витрати (стан 4). оцінює спряження конкретного препарату. Універсального здорового RCR для всіх тканин і протоколів немає; експериментально роз’єднаний стан не відтворює точно фізіологічний UCP1 [27].
| Етап аналізу | Корисний висновок | Обмеження |
|---|---|---|
| Базальний OCR | Вихідне споживання кисню | Сума АТФ-зв’язаного дихання, витоку та інших внесків |
| Олігоміцин | Різниця до/після оцінює АТФ-зв’язаний компонент | Блокада змінює потенціал; залишок не специфічний для UCP1 |
| Титрований FCCP | Максимальне дихання за належних умов | Замала/надмірна доза і брак палива спотворюють результат |
| Ротенон + антиміцин A | Немітохондріальне залишкове споживання | Потрібні контроль токсичності, фон і нормалізація |
Кількість і стан клітин, нормалізація за білком/ДНК, субстрати й тривалість мають бути зіставні. ECAR вимірює позаклітинне підкислення і без додаткового розрахунку не дорівнює лише гліколізу. Для UCP1-специфічності потрібні вимкнення й відновлення гена, контроль жирних кислот та нуклеотидів, потенціал і, за можливості, прямий мембранний струм. Багаторазове зростання OCR саме не ідентифікує білок.
ATP, ADP, GTP і GDP інгібують UCP1 у біохімічних системах. Зв’язування обмежує провідність. Загальний ATP клітини не дорівнює доступному інгібітору: важливі вільна й Mg²⁺-зв’язана форми, pH, компартмент та оточення [8].
«Багато ATP — UCP1 завжди закритий» надто грубо. Зміни ліполізу й доступних жирних кислот співіснують з нуклеотидною регуляцією. Структура загальмованого стану не скасовує швидкого фізіологічного ввімкнення тепла.
Довголанцюгові жирні кислоти потрібні для характерної активності. У моделі циклу RCOOH проходить ліпідною фазою до матриксу й віддає протон, а RCOO⁻ повертається через переносник. Сумарно протон потрапляє всередину, навіть якщо білок безпосередньо переносить аніон [10; 11].
Інші моделі утримують жирну кислоту біля білка: карбоксильна група бере участь у перенесенні протона, гідрофобний хвіст обмежує повне переміщення. Кофактор тут не означає звичайну відкриту водну пору.
Електрофізіологія Fedorenko на внутрішній мембрані бурожирових мітохондрій прямо пов’язала струм UCP1 з кислотами та аніонною групою. Досліди уточнили моделі, але не дозволяють малювати довільну низку амінокислот як остаточно доведений шлях кожного протона [7].
В обох поясненнях важлива вільна доступна кислота. Альбумін і FABP зв’язують її й змінюють активну концентрацію; загальні ліпіди її не вимірюють. Концентрацію в реконструйованій мембрані не переводять прямо в дозу перорального активатора.
Охолодження шкіри запускає центральну терморегуляцію й симпатичний вихід до жиру. Норадреналін активує β-рецептори; Gs, аденілатциклаза, цАМФ і PKA передають сигнал краплі. У гризунів важливий β3, але людський BAT не описується лише цим: первинні дані вказують на суттєвий β2-внесок [31].
PKA змінює регуляцію периліпіну PLIN1 та гормончутливої ліпази HSL. Звільнення ABHD5/CGI-58 підтримує ATGL: триацилгліцерол стає діацилгліцеролом, HSL продовжує, моногліцеридліпаза завершує гідроліз. TG → DAG → MAG → гліцерин і жирні кислоти передає послідовність; номери місць фосфорилювання залежать від білка й виду.
Жирні кислоти — і паливо окиснення, і учасники активації UCP1. Субстрати надходять також з крові; крапля не єдине джерело. Швидке ввімкнення наявного переносника відрізняється від повільнішого збільшення його кількості та мітохондріальної маси.
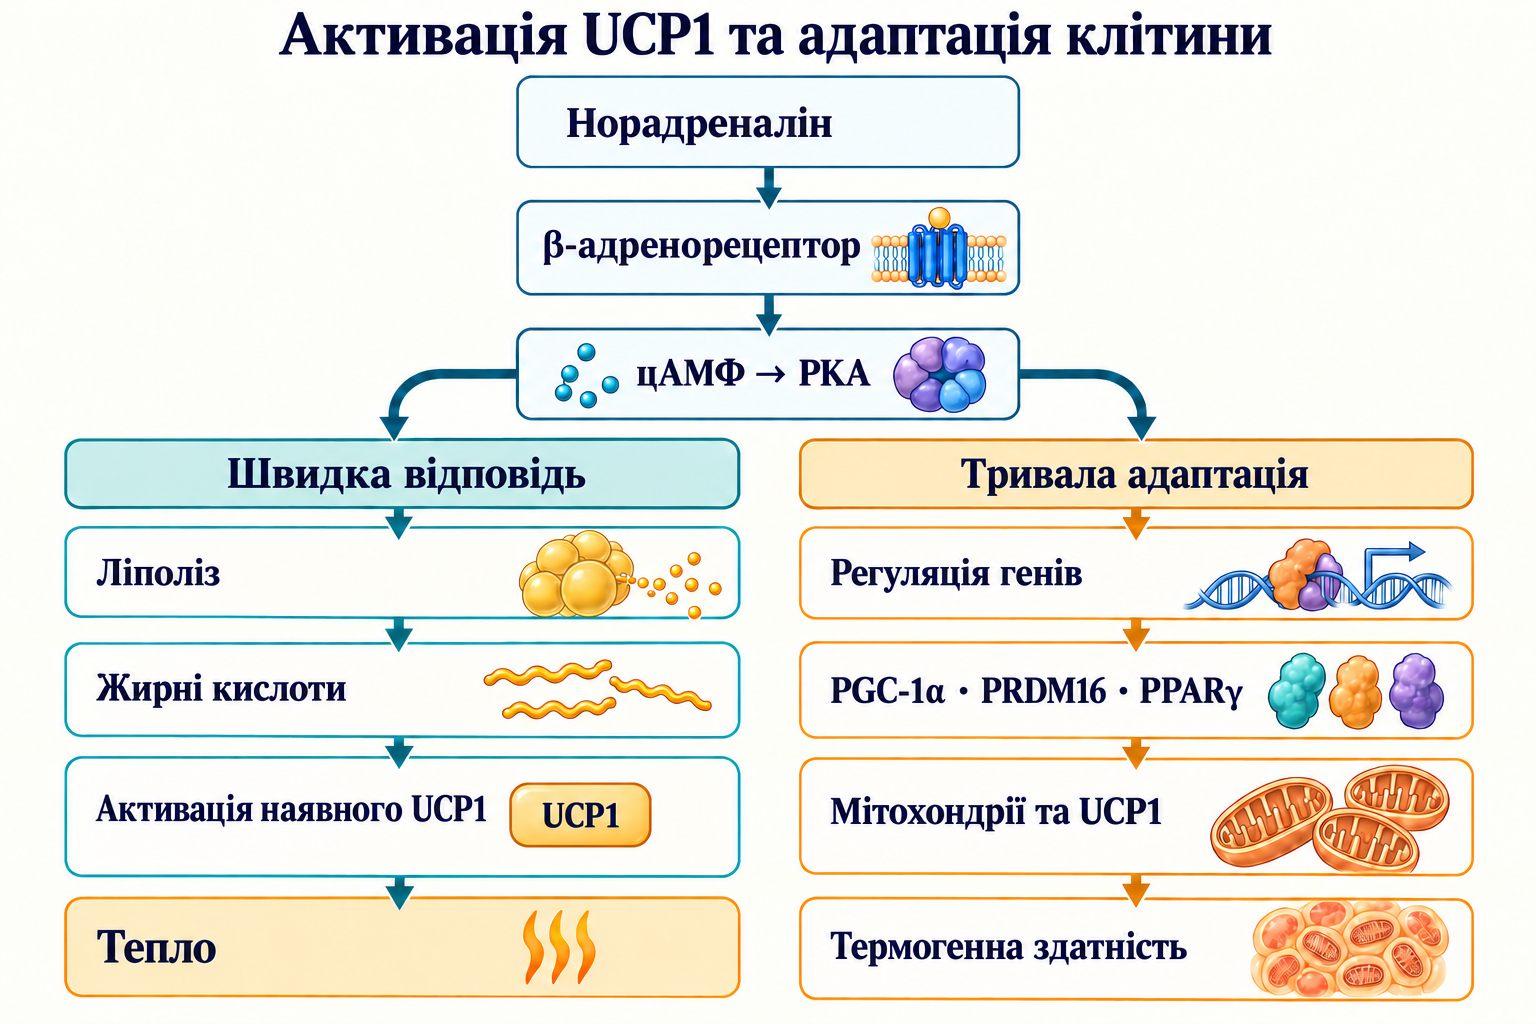
Розгалуження відділяє функціональну активацію від програми клітини. PGC-1α, PRDM16 і PPARγ взаємодіють, не є послідовними ферментами. Схема не встановлює універсальної тривалості й не гарантує бежевіння за кожного підвищення цАМФ.
Бурі адипоцити зазвичай мають багато дрібних крапель і мітохондрій; кровопостачання доставляє паливо та розподіляє тепло. Бежеві клітини виникають у певних білих депо за окремих стимулів, із попередників або через перемикання наявних клітин. Скасування стимулу послаблює фенотип, залишаючи елементи пам’яті активації [20].
Myf5, Pax7 та інші маркери допомогли досліджувати походження у мишей, проте «весь бурий жир Myf5⁺, весь бежевий Myf5⁻» надмірно. Панелі Zic1/Lhx8 і CD137/TMEM26/TBX1/CITED1 корисні в конкретних моделях, не є універсальними клінічними тестами депо людини. Походження, молекулярні ознаки та функція разом надійніші за один маркер.
PRDM16 взаємодіє з партнерами C/EBPβ і PPARγ та організує термогенну ідентичність. Перемикання програм бурого жиру й м’язів показало його причинну роль у моделях [17]. Зміна одного білка в організмі не створює автоматично нове функціональне депо.
PGC-1α, продукт PPARGC1A, — коактиватор, не самостійний ДНК-зв’язувальний фактор. Через PPAR, ERR і ядерні респіраторні фактори він узгоджує окисний обмін та мітохондріальний біогенез, включно з TFAM. Холод-індуковану роль описав Puigserver [18]. Більше транскрипту не означає фіксованого подвоєння мітохондрій або однакового теплового приросту.
EBF2 сприяє доступності хроматину й взаємодіям з ремоделювальними комплексами, зокрема SWI/SNF. Мережа потребує узгодження клітинної ідентичності, переносника, палива та іннервації. Назва мішені не підтверджує ефект добавки, яка нібито керує всією системою.
У дослідах Qiang SIRT1-залежне деацетилювання PPARγ, включно з Lys268/Lys293, змінювало взаємодії регуляторів і сприяло буроподібному ремоделюванню білого жиру. Це конкретне зв’язування модифікації білка з програмою, а не доказ незворотного бежевіння після активації сиртуїнів [23].
SIRT1 використовує NAD⁺, але підвищення кофактора у крові не гарантує результату в депо. Значущі компартменти, доступність ферменту й контекст PPARγ. Споріднену тему розглянуто у матеріалі про ніацин і безпеку вітаміну B3.
Обговорюють UCP1 −3826A>G (rs1800592), UCP2 −866G>A (rs6593660) і UCP3 −55C>T (rs1800849). Асоціації з експресією, ожирінням і вуглеводним обміном залежать від популяції, умов та дизайну. Цікавий промоторний варіант не є індивідуальним діагнозом чи незмінною втратою термогенезу.
Валідованого алгоритму температури, тривалості охолодження або берберину за SNP немає. Зв’язок UCP2 з діабетом не доводить потреби посилити чи пригнічувати білок у конкретної людини. Асоціації UCP3 також не обіцяють захисту від інсулінорезистентності. Генетика формує дослідницьке питання, не замінює оцінки ризику.
UCP2/UCP3 не відтворюють спеціалізацію високої активності UCP1 у бурому жирі. Кількість, регуляція й тканинні завдання різні; вимкнення генів не показує простого зникнення основного термогенезу без тремтіння. Відсутність фенотипу не означає відсутності функції: компенсація, раціон, температура утримання та тип клітини змінюють результати [13].
Для UCP2 важливі прямі транспортні дані. Vozza показав перенесення C4-метаболітів — малату, оксалоацетату, аспартату — пов’язане з обміном фосфату і протонів [30]. Це додає роль розподілу вуглецевих субстратів між окисними шляхами. Зведення до слабкого протонного каналу втрачає суттєву біологію.
Частина продукції АФК залежить від потенціалу, відновленості переносників та напрямку електронів. За певних субстратів високий градієнт сприяє зворотному транспорту до комплексу I; невелике зниження рушійної сили може зменшити цей супероксидний внесок. Залежність різна для ділянок ланцюга та станів обміну [12].
«Зсув 10–15 мВ усуває 70–90% радикалів без енергетичної ціни» не є універсальним правилом. Цифра одного препарату не задає норми; негативний знак потенціалу потребує коректного порівняння. Стрес залежить також від усунення АФК, їхньої локалізації та пошкодження мішеней.
Досліджували зворотний зв’язок через жирні кислоти і пероксидні продукти, як 4-HNE, для UCP-залежної провідності. Умови, специфічність і масштаб суттєві. АФК також сигналізують; нижча реєстрація не завжди означає кращий імунний захист або довголіття. М’яке роз’єднання — механістична концепція, не готова профілактика.
Для UCP3 обговорюють допомогу при невідповідності надходження жирних кислот окисній здатності. Експорт аніонів і продуктів пероксидації запропоновано як захист від навантаження. Це не універсально доведене селективне вивезення всіх гідропероксидів з матриксу [13].
Пероксидація стосується мембранних фаз; не всі продукти — вільні водорозчинні аніони матриксу. Внутрішня мембрана малопроникна для багатьох заряджених речовин, але містить спеціалізовані переносники. Кожен субстрат потребує доказу транспорту, напрямку й значення. Дані про C4 UCP2 слід відділяти від ліпідних гіпотез UCP3.
Секреція інсуліну у відповідь на глюкозу включає:
Зміни обміну впливають на послідовність. Zhang пов’язав UCP2 з негативною регуляцією секреції у моделях [16]. Контекст клітини, субстрати, редокс-сигнали й хронічне навантаження не дозволяють пояснювати все відведенням протонів. Один нокаут не обґрунтовує пригнічення UCP2 для лікування діабету.
У макрофагах UCP2 бере участь у метаболічних і редокс-змінах активації та захисту від патогенів. «Більше UCP2 — M2, менше — M1» не відтворює розмаїття станів. Бактерицидний дихальний вибух пов’язаний також з NADPH-оксидазами, не лише потенціалом мітохондрій. Антиоксидантний ефект одного досліду не встановлює загальну протизапальну дію.
У дорослих термогенну тканину часто виявляють у шийно-надключичній ділянці, також паравертебрально, у середостінні та інших депо. Склад неоднорідний і залежить від віку, температури, харчування та методу. Карта не встановлює однакової маси активної тканини в кожного [4; 6].
¹⁸F-ФДГ ПЕТ-КТ реєструє захоплення аналога глюкози, допомагаючи знайти холод-активовану тканину. Це не пряме споживання кисню або тепло. Інсулін, кровотік і субстрати змінюють сигнал; жирні кислоти можуть живити термогенез без пропорційного приросту ФДГ. Потрібні інші методи, включно з непрямою калориметрією та тканинним окисненням.
Бурий жир отримує глюкозу й ліпіди з крові. LPL вивільняє кислоти з багатих тригліцеридами ліпопротеїнів; транспорт та окиснення підтримують тепло. Bartelt показав внесок BAT у кліренс тригліцеридів у мишей, Chondronikola — зв’язок активації з енергетичним і глюкозним обміном людини [25; 26]. Вид і режим досліду принципові.
Ці результати та зворотний зв’язок BAT з індексом маси тіла не гарантують «150–300 ккал щодня» або лінійних «4–8 кг за рік». Апетит, рухова компенсація та адаптація змінюють баланс. Кореляція BAT зі здоров’ям не доводить, що він пояснює всі відмінності груп.
| Речовина | Обговорюваний механізм | Межа доказів |
|---|---|---|
| Капсаїцин і капсиноїди | TRPV1-сенсорні сигнали й симпатична відповідь | Малі людські дослідження не встановлюють тривалого лікування ожиріння; екстракт не дорівнює перцю |
| Берберин | AMPK, окисні програми, PGC-1α/PRDM16 | Zhang 2014 — експериментальні моделі, не доведене створення бежевого депо у пацієнтів |
| Ментол та споріднені | Холод-чутливий TRPM8 | Активація не гарантує безпечної імітації охолодження або схуднення |
| EGCG і кофеїн | Кілька метаболічних та сигнальних мішеней | Тривале гальмування COMT у BAT і пряма блокада PDE клінічною дозою кофеїну не доведені |
| Ресвератрол і птеростильбен | Модельні AMPK/SIRT1 та транскрипційні взаємодії | Деацетилювання PPARγ не доводить еквівалентність добавки активації ферменту й тривале бежевіння |
| Урсолова кислота | IGF-1/Akt та зміни м’язів/жиру в моделях | Тваринні результати не встановлюють клінічної термогенної ефективності |
Людські дослідження капсиноїдів вимірюють холод-індуковані витрати й рекрутування BAT, але вибірки та сурогатні результати обмежують висновки про довготривалу масу тіла [33]. Берберин 2014 вивчали в клітинах і тварин [24]. Різні питання не підтверджують синергії спільного прийому.
Харчове походження не гарантує серцево-судинної безпеки концентрованої суміші. Кофеїн може посилити серцебиття і порушити сон; екстракти зеленого чаю мають власні межі. Склад і лікарські взаємодії значущі. Порівняння напою й концентрату є в матеріалі про зелений чай, поліфеноли та безпеку.
Мірабегрон — дослідницький приклад адренергічної стимуляції, але результати гризунів і людини різні. Доза, селективність та серцево-судинні ефекти обмежують перенесення [31]. Підвищення тепла в досліді не обґрунтовує самопризначення для схуднення.
Навантаження змінює сигнали м’язів. Boström пов’язав PGC-1α, FNDC5 та міокін іризин з буроподібною програмою у моделях [19]. Це не доводить, що вся користь тренувань спричинена бежевінням людського жиру. FNDC5 розщеплюють ферменти, PGC-1α регулює експресію; малювати прямий протеоліз коактиватором неправильно.
ANP і BNP через NPR-A/гуанілатциклазу, цГМФ, PKG і p38 MAPK активують ліполітичні й термогенні програми. Bordicchia показав шлях у мишачих і людських адипоцитах [21]. Це додаткова регуляція, не достатнє пояснення серцевої кахексії чи доказ користі високого BNP для пацієнта.
Meteorin-like (METRNL) бере участь у модельних імунно-жирових взаємодіях адаптації [22]. Потрібно розрізняти причинний експеримент у тварин, циркулюючий маркер і доведений лікувальний результат. Гормональний діалог не робить усі компоненти безпечними мішенями посилення.
T₃ підтримує транскрипційні та адренергічні відповіді. Локальний DIO2 перетворює T₄ на T₃ та змінює доступність сигналу. Це фізіологія, а не підстава для системного тиреотоксикозу: надлишок впливає на серце, кістки й м’язи далеко поза BAT.
Hanssen 2015: після акліматизації чутливість до інсуліну зросла приблизно на 43% у восьми пацієнтів; переважали зміни м’язового GLUT4, внесок BAT був малий [28]. Це не доказ GLUT4/AMPK-ефекту бурих адипоцитів: AMPK не пояснював спостереження.
Інше мале дослідження 2021 року не покращило чутливість після десяти днів м’якого холоду без помітного тремтіння у дев’яти пацієнтів [32]. Протокол і м’язова активність залишають питання відкритим; обидві роботи не замінюють порівняльного лікувального випробування.
Жовчні кислоти також сигналізують. Модель Watanabe пов’язала TGR5/GPBAR1 з цАМФ, DIO2-залежною локальною тиреоїдною активністю й енерговитратами [29]. Мікробіота перетворює первинні кислоти на вторинні, змінюючи пул і рецепторні ефекти. Існують інші рецептори й тканини, тому селективне ввімкнення BAT без системних ефектів не гарантоване.
Механізм не доводить лікування діабету берберином або розчинними волокнами саме через UCP1 і не робить самостійний прийом жовчних кислот стратегією термогенезу. Мішені потребують людської оцінки ефективності, розподілу та небажаних ефектів.
UCP1 показує фізіологічну користь нижчої ефективності спряження для температури. UCP2/UCP3 нагадують про різні завдання, а редокс-сигнали й субстрати не зводяться до калорій. Відмінності є в таблиці 2.3; повторення матриці з непідтвердженими відсотками й однаковими активаторами їх приховало б.
Рух, харчування та лікування обміну оцінюють за власними клінічними результатами. Тренування змінює міокіни й програми, але користь не вимагає доказу підвищення UCP1. Переносимість прохолоди не тест потужності: тремтіння, судини, одяг і звичка змінюють відчуття.
Капсаїцин, берберин, EGCG/кофеїн, ресвератрол і ментол разом або з холодом не валідовані як єдиний клінічний протокол UCP1. Дози й тривалості різних механістичних дослідів не складаються в доведений режим. SHU також не дають точної кількості капсаїцину в капсулі без складу.
Холод викликає симпатичну й судинну реакцію. Інтенсивний вплив і холодна вода відрізняються від контрольованої м’якої адаптації. За серцево-судинних хвороб, порушеної чутливості та інших станів ризик важливіший за механістичну обіцянку. Біль у грудях, виражена слабкість, сплутаність і втрата контролю тремтіння потребують припинення та медичної оцінки. Універсальної домашньої температури й лікувальної тривалості не встановлено.
| Показник | Що оцінює | Чого не вимірює |
|---|---|---|
| Глюкоза, HbA1c | Вуглеводний обмін за показаннями | Специфічний UCP1 |
| Тригліцериди, ApoB | Ліпіди й серцево-судинний ризик | Окремий кліренс бурим жиром |
| Інсулін натще, HOMA-IR | Непряму оцінку у відповідному контексті | Пряму тканинну чутливість чи потужність BAT |
| ТТГ, вільний T₄ | Функцію залози за показаннями | DIO2; широкий скринінг T₃ не тест бежевіння |
| Пульс і тиск | Гемодинаміку та переносимість | Ефективність роз’єднання |
| ПЕТ-КТ | Спеціальне дослідницьке чи клінічне питання | Повсякденний скринінг слабкого бурого жиру |
Вага, HbA1c і тригліцериди змінюються з багатьох причин. Аналізи не приписують ефект лише UCP. Втручання потребує відтворюваних клінічних результатів та безпеки; молекулярна деталізація не замінює їх.
Цю наративну наукову редакцію наданого оригіналу завершено 8 жовтня 2026 року. Теми й механістична послідовність збережені, спірні перенесення клітинних і тваринних даних на людину уточнені. Цільова звірка первинних робіт стосувалася ключових транспортних і клінічних тверджень та виправила виявлені бібліографічні записи. Це не систематичний пошук усієї літератури, не формальне GRADE й не зовнішнє рецензування. Дужкові посилання відповідають спільному списку; ілюстрації пояснюють без кількісного масштабу.
Він створює паралельний шлях витрати градієнта. Клітині потрібен АТФ; частка тепла залежить від регуляції та субстратів.
Ні. Тканинні завдання різні: UCP2 переносить C4 у дослідах, UCP3 пов’язаний з ліпідною адаптацією. Це не універсальні доведені термогеніни.
ФДГ відображає захоплення аналога глюкози, не пряме тепло чи окиснення. Індивідуальне схуднення не прогнозує.
Валідованого алгоритму температури, тривалості чи нутрицевтиків немає. Популяційна асоціація не є призначенням.
Капсаїцин, берберин, EGCG/кофеїн, ресвератрол і ментол не валідовані як єдиний протокол. Механізми та харчове походження не встановлюють ефективність і безпеку суміші.