
Креатинкиназа мен фосфокреатин: энергия және қоспалар шегі
CK мен MtCK митохондрияларды миофибрилла, сорғы және синапспен қалай байланыстырады: құрылым, қайтымды химия, креатин тасымалы және спорттық, жүректік, неврологиялық тұжырымдардың шегі.
CK мен MtCK митохондрияларды миофибрилла, сорғы және синапспен қалай байланыстырады: құрылым, қайтымды химия, креатин тасымалы және спорттық, жүректік, неврологиялық тұжырымдардың шегі.
АТФ миозин, кальций сорғылары және синапстық механизмдер жұмыс істейтін жерде жұмсалады; оның тотығу арқылы синтезделетін елеулі бөлігі митохондрияларда түзіледі. Креатинкиназа жүйесі АТФ пен креатин арасында фосфорил тобын қайтымды тасымалдап, осы үдерістерді байланыстырады. Фосфокреатин (PCr) — жылжымалы тасымалдаушы әрі сұраныс тез өзгергенде пайдаланылатын шектеулі қор.
Мақала бастапқы CK–MtCK материалын жалғастырады: диффузия мен изофермент құрылымынан жүрекке, миға, креатин тасымалына және клиникалық шектерге дейін. Жүйенің метаболизмдегі маңызы оны қоспамен күшейту міндетті түрде ауруды емдейді деген сөз емес.
Цитозольде ақуыздар, мембраналар мен цитоскелет бар; сынауықтағы концентрация белгілі АТФаза маңындағы қолжетімділікті сипаттамайды. Митохондриялар жасуша ішінде таралған, сондықтан энергия бұлшықет талшығының бүкіл ұзындығын жүріп өтуге міндетті емес. Дегенмен қашықтық, геометрия және жергілікті реакциялар жоғары жүктемелі бөліктерді қамтамасыз етуге әсер етеді.
Еркін бірөлшемді диффузия моделі:
— диффузия коэффициенті, — тән қашықтық. өзгермесе, қашықтық екі есе артқанда тән уақыт төрт есе артады. Бұл тәуелділіктің мысалы, кардиомиоцитті қамтамасыз етудің әмбебап уақыты емес: шекаралар, байланысу және митохондрия орналасуы жағдайды өзгертеді. АТФ диффузиясын физикалық тұрғыдан мүмкін емес деу қате.
Ағын тек жалпы қорға емес, градиентке тәуелді:
Өлшенген жалпы АДФ құрамына байланысқан және бос нуклеотид кіреді. Кинетикалық есепте олар өзара алмастырылмайды. «АДФ-тың 95%-ы актинмен байланысқан» деген әмбебап тұжырым компартменттенуді түсіндіруге қажет емес және барлық тінге қолданылмайды.
АТФ гидролизінің энергиясы бейорганикалық фосфатқа, Mg мен қышқылдыққа да байланысты. АТФ/АДФ қатынасының жоғары болуы SERCA немесе басқа сорғыға жеткілікті потенциалды өздігінен қамтамасыз етпейді. Сондықтан орташа АТФ тұрақты болғанда да жергілікті регенерация және АДФ әкетілуі маңызды.
Saks және әріптестерінің жасушаішілік энергетикалық бірлік тұжырымдамасы митохондрия, миофибрилла, мембрана және фосфотрансферазаларды байланыстырады. Оқшауланған митохондрия мен өткізгіш талшықтың АДФ-қа байқалатын тыныстық сезімталдығы үлгі дайындауға және тін ұйымына тәуелді; ол тірі жасушаның әмбебап тұрақтысы емес. VDAC реттелуі, оның ішінде тубулинмен байланыс, алмасуды шектей алады, бірақ сыртқы мембрананы АДФ үшін толық жабық етпейді.
Мембранааралық кеңістіктегі митохондриялық CK (MtCK) ANT арқылы матрикстен шығарылған АТФ-ты PCr түзуге пайдаланады. PCr тұтынушы жанындағы цитозольдік CK-ға жетіп, фосфорил тобын АДФ-қа қайтарады. Креатин (Cr) кері жолға қолжетімді болады. Бұл байланыс нуклеотид диффузиясын, гликолизді және аденилаткиназа желілерін толықтырады, жоймайды (Wallimann et al., 1992; Dzeja & Terzic, 2003).
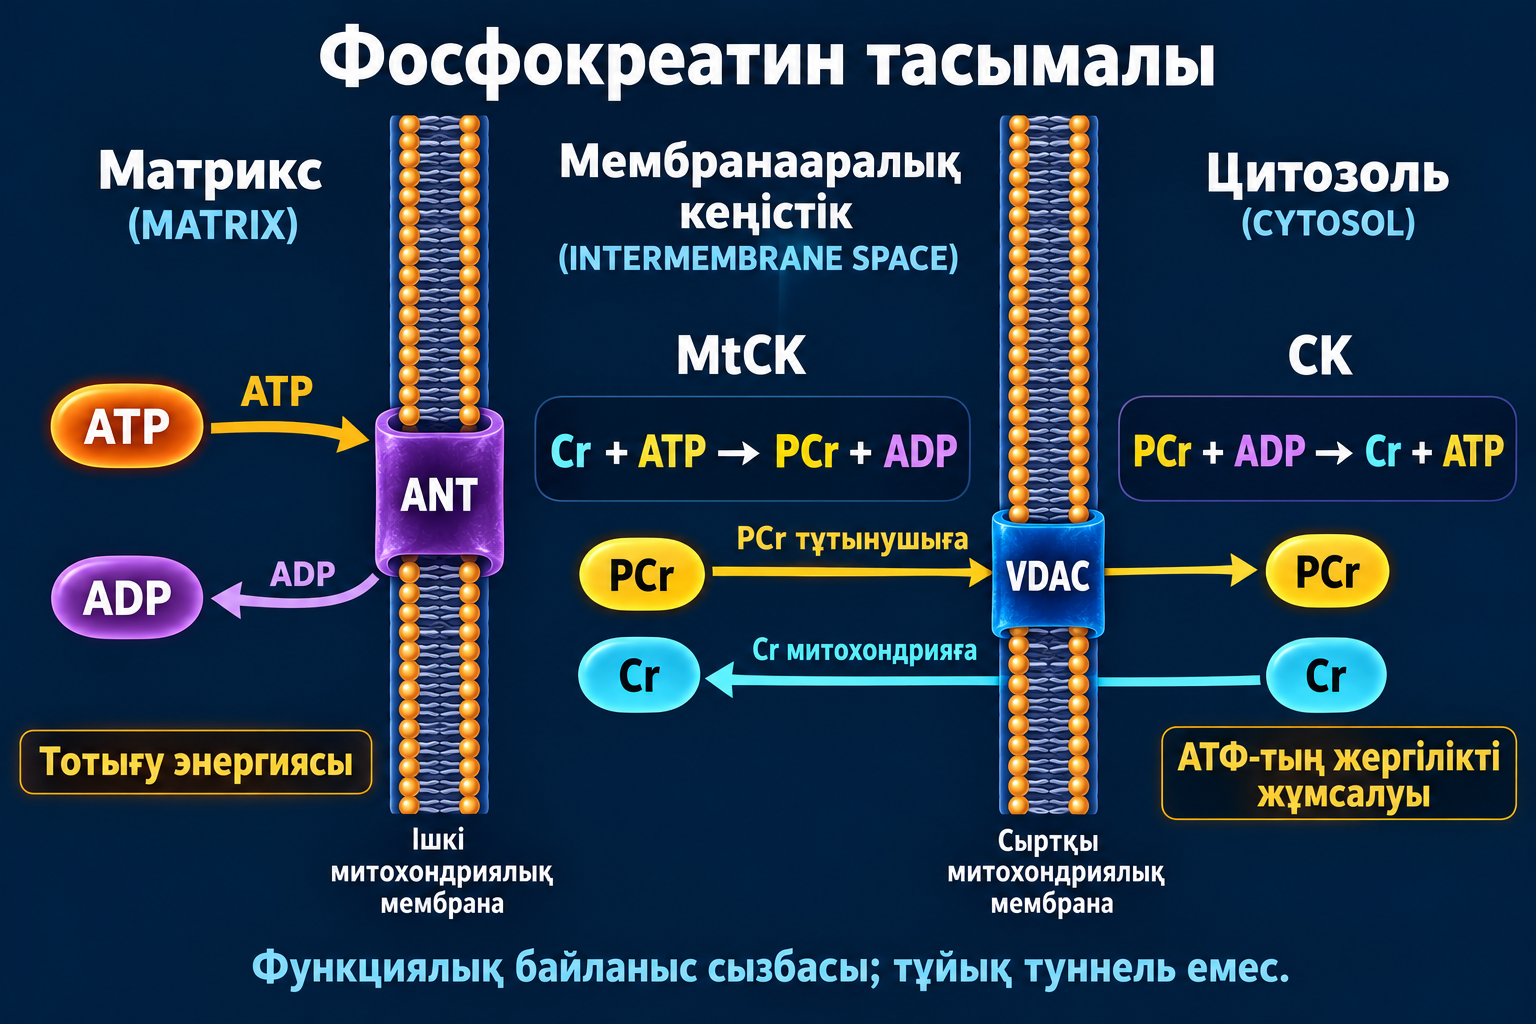
Функциялық сызба: ANT ішкі, VDAC сыртқы мембранада, MtCK екеуінің арасында. Жебелер жұмыс кезіндегі басым алмасуды көрсетеді; тұйық молекулалық туннель болжанбайды.
CK гуанидинкиназалар тобына жатады. Омыртқасыздардағы туыстас жүйелер, мысалы, аргининді пайдаланады; эволюциялық туыстық барлық жануар энергетикасының бірдей екенін білдірмейді. Адамның CKM және CKB гендері цитозольдік M және B субъбірліктерін кодтайды. Олардың димерлері MM, MB және BB түзеді; таралуы тін мен даму кезеңіне байланысты.
MM-CK қаңқа бұлшықетінде басым және жүрекке маңызды; MB тек жүректік емес. BB-CK жүйке жүйесінде және басқа тіндерде жұмыс істейді. Миогендік реттеушілер CKM экспрессиясына әсер етеді, алайда MyoD/миогенин мен MEF2 бірдей E-box-пен байланысатын бір фактор емес.
Митохондриялық ақуыздар бағыттаушы сигналы бар ізашар ретінде синтезделіп, органеллаға импортталады. Жетілген MtCK матриксте емес, мембранааралық кеңістікте жұмыс істейді. Импорт жолы мен ізашардың өңделуі соңғы орналасумен шатастырылмайды.
| Тармақ | Гендер / құралу | Жұмыс орны | Функциялық мәні |
|---|---|---|---|
| Бұлшықеттік цитозольдік | CKM; MM және B-мен MB | Миофибрилла, сорғылар маңы | Жиырылуда АТФ жергілікті регенерациясы |
| Цитозольдік B | CKB; BB және M-мен MB | Жүйке және басқа жасушалар | Өзгермелі жергілікті сұраныс |
| Саркомерлік MtCK | CKMT2; димерлер мен октамерлер | Бұлшықет митохондриясының мембранааралық кеңістігі | Тотығу синтезін PCr-мен байланыстыру |
| Убиквитарлық MtCK | CKMT1A/CKMT1B; димерлер мен октамерлер | Бірқатар тіннің мембранааралық кеңістігі | Фосфотасымалдың кеңістіктік ұйымы |
«Бұлшықеттік» және «убиквитарлық» экспрессия сипатын көрсетеді, абсолютті шекара емес. , меншікті белсенділік және изофермент үлесі әдіске тәуелді; барлық жасушаға ортақ тұрақтылар кестесі жалған дәлдік берер еді.
Қандағы CK/CK-MB ферменттің шығуы мен клиренсін көрсетеді, тасымал жылдамдығын емес. Жүктеме, қаңқа бұлшықетінің жарақаты және макро-CK нәтижені өзгертеді. Инфаркттың қазіргі әмбебап анықтамасы клиникалық жағдаймен бірге жүрек тропониніне сүйенеді; CK-MB бұл өлшемдерді алмастырмайды (Thygesen et al., 2018).
Fritz-Wolf et al. (1996) кристаллографиясы мен PDB 1CRK тауықтың саркомерлік MtCK ферментін 3,0 Å ажыратымдылықпен сипаттайды. Октамер төрт димерден тұрады; орталық саңылау протон арнасы емес. Белсенді орындар субъбірлік домендерінің арасындағы ойықта орналасқан.
PDB 1QK1 адам uMtCK құрылымын 2,7 Å деңгейінде сипаттайды (Eder et al., 2000, Proteins). Бұл бастапқы мәтіндегі 2,1 Å «brain-type» CK деп қате байланыстырылған еңбек емес. Жеке фермент құрылымы бүкіл ANT–MtCK–VDAC жүйесінің атомдық ұйымын немесе толық тасымал циклін анықтамайды.
MtCK димері мен октамері қайтымды алмасады:
Екі пішін де каталитикалық белсенділікті сақтай алады. Октамер мембранамен әрекеттесуге маңызды, бірақ жалғыз «қосылған» пішін емес. Субстрат, иондық орта, липидтер және тотығу өзгерістері құралуға әсер етеді. АДФ, Cr және нитрат үйлесімі тәрізді өтпелі күй аналогтары — биохимиялық құрал, нитратпен емдеуге негіз емес.
MtCK-ның оң зарядты беттері теріс липидтермен, әсіресе ішкі мембрана кардиолипинімен әрекеттеседі. Тәжірибелер мембрана жақындасуы мен түйісу тұрақтануын қолдайды, бірақ әр тінге ортақ байланысу тұрақтысын және бірдей геометрияны бекітпейді. Кардиолипин — мембраналық ортаның бөлігі, фосфат жүретін «сым» емес.
ANT ішкі мембрана арқылы нуклеотид алмастырады: АТФ матрикстен шығып, АДФ қайтады. VDAC сыртқы мембрананың шағын метаболиттерге, соның ішінде Cr/PCr-ге арналған арнасы. MtCK осы ағындардың мембранааралық жағында. Оны матрикске не өткізбейтін мембрана арқылы VDAC-тың цитозольдік бетіне орналастыру қате.
Субстратты бағыттап беру жергілікті субстратты басым пайдалану және өнімді қайта қолдануды білдіреді. Ақуыз жақындығы мен шектеулі диффузия ықпал етуі мүмкін; әр АТФ молекуласы тұрақты стехиометриялы герметикалық кешеннен өтеді деген дәлел жоқ. Тарихи үлгілер тәжірибелік байланыс пен тура мағыналы туннельді ажыратқанда пайдалы (Schlattner et al., 2006).
pH және Mg байланысуы бекітілгенде биохимиялық түрлендірілген жазба қолайлы:
— өлшемсіз белсенділік, — газ тұрақтысы, — абсолютті температура. PCr және АТФ гидролизінің шамамен −43 және −31 кДж/моль стандартты энергиясы PCr-дің АДФ-ты фосфорлауын түсіндіреді. Бұл нақты стандартты жағдайлар, әр бөліктегі шынайы энергия емес. PCr синтезінің стандартты мүшесі оң болғанымен, жергілікті белсенділіктер жиынтық реакцияны қолдай алады.
Mg және айқын жазылған иондық реакция үшін сәйкес түрлендірілмеген стандартты энергия мен толық реакциялық қатынас қажет. Түрлендірілген үстіне -ға қосу pH-ты екі рет есептейді. Белсенділіктер арқылы жазылған тепе-теңдік тұрақтысы өлшемсіз.
Таңдалған иондық түрлер үшін PCr-ден АТФ регенерациясы протон тұтынады. Тиімді стехиометрия протондану мен Mg байланысуына тәуелді; «барлық жағдайда бір протон» әмбебап емес. Буфер шектеулі. Жүктеме ацидозын тек «сүт қышқылына» тіреуге болмайды: АТФ айналымы, тасымал және буферлер маңызды. Тыныс тізбегі протонды ішкі мембрана арқылы айдайды, мембранааралық протонды жай бейтараптамайды.
Кездейсоқ Bi–Bi механизмінде субстраттар әртүрлі ретпен байланыса алады, бірақ тасымал екеуі бар ферменттік кешенде өтеді. Mg нуклеотидті үйлестіреді; домендер мен ілмектер қозғалысы каталитикалық геометрияны құрып, су қолжетімділігін шектейді. Бұл тиімділікке көмектеседі, барлық изоферменттің бірдей немесе жасуша мінсіз деген сөз емес.
АТФ жұмсалуы күрт артса, цитозольдік CK PCr мен АДФ пайдаланады. Тотығу арқылы өндіріс қайтадан сұранысты жапқанда PCr толады. Уақыттық буфер ауытқуды жұмсартады, кеңістіктік тасымал фосфорил потенциалын таратады; қызметтер байланысқан, бірақ бөлек.
ANT маңындағы АДФ тынысты ынталандыра алады. Cr қосқанда байқалатын тәжірибелік әсер функциялық байланысты қолдайды, организм үнемі ең жоғары State 3 күйінде дегенді білдірмейді. PCr қалпына келуі оттегі, перфузия, митохондрия қуаты, pH және жүктемеге тәуелді. PCr градиенттер мен реакциялар арқылы қозғалады; VDAC бірбағытты электр сорғысы емес.
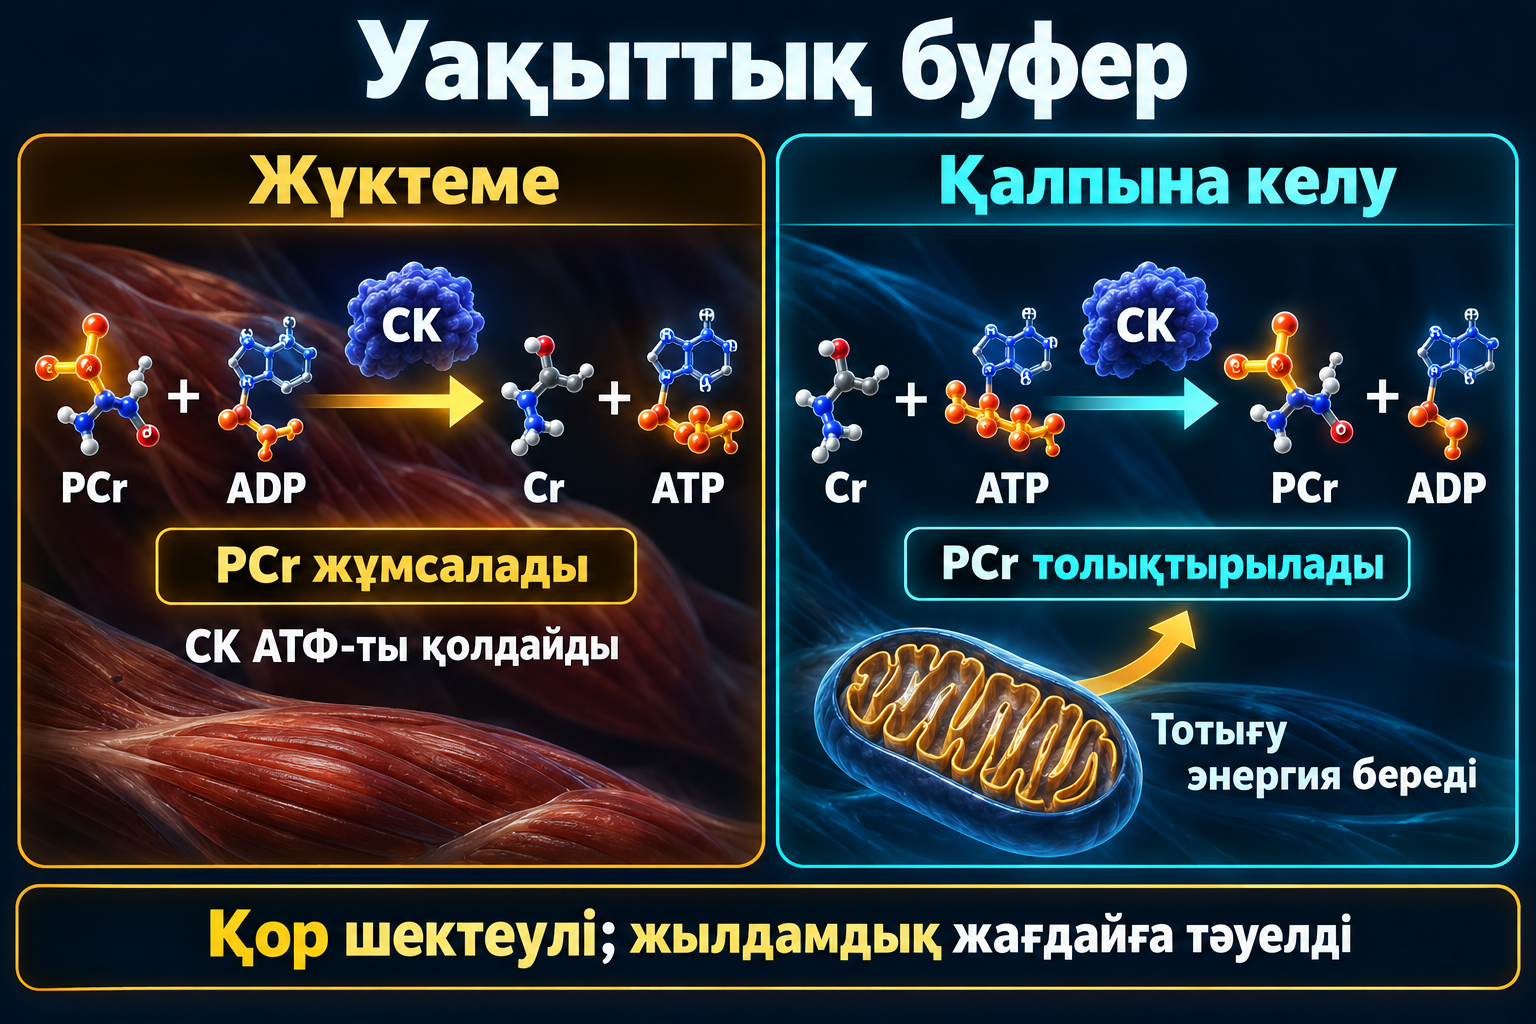
Жүктемеде қор АТФ регенерациясына жұмсалады; қалпына келуде метаболизм энергиясы фосфорил тобын Cr-ге қайтарады. Сапалық сызба барлық бұлшықетке бір уақыт тағайындамайды. Молекулаға ұқсас белгілер шартты, тексерілген атомдық құрылым емес.
MM-CK M-сызық ақуыздарымен, оның ішінде миомезин және M-ақуызбен байланысып, жиырылу аппараты жанында АТФ регенерациясын ұйымдастырады. АТФ миозинді актиннен ажыратып, циклді жалғастыруға қажет; АДФ кинетикаға әсер етеді. CK жақындығы жергілікті ауытқуды азайтады, бірақ әр миозин басында бірдей АТФ/АДФ қатынасын кепілдемейді.
SERCA Ca-ды саркоплазмалық ретикулумға қайтарады: SERCA1a жылдам, SERCA2a жүрек пен баяу бұлшықетке тән. Фосфотасымал АТФ қолжетімділігі мен кальций градиентіне қарсы жұмыс потенциалын қолдайды. Шығын үлесі мен ең төмен бос энергия тінге және жағдайға байланысты; бір сан барлық сорғыны сипаттамайды.
Na/K-АТФаза қозғыштық, тасымал және Na/Ca алмастырғышына қажет градиенттерді сақтайды. Соңғысының бағыты электрохимиялық жағдайға тәуелді, кері де өзгеруі мүмкін. Мембраналық потенциал сорғылар мен өткізгіштіктерден бірге түзіледі, бір CK-тәуелді үдерістен емес.
CK синапстық айналымға, актин қайта құрылуына және сорғыға қатысады. V-АТФаза везикулада медиатор тасымалдаушылары пайдаланатын протон градиентін жасайды. Астроцитте глутамат ұсталуы Na градиенті мен Na/K-АТФазаға байланысты. PCr осы сұранысты митохондриялық АТФ пен гликолизбен бірге жабады. Пластикалылық пен экзоцитоз тек бір тасымал жүйесіне тәуелді емес.
Жүрек жеткіліксіздігінде Cr мөлшері, PCr қоры, изофермент белсенділігі мен фосфотасымал жылдамдығы өзгереді. PCr АТФ-тан ерте не көбірек төмендеуі мүмкін: буфер таусылып, қажетті нуклеотид деңгейі ішінара сақталады. Өзгеріс ауру себебі мен сатысына тәуелді, бәріне ортақ пайыз емес (Neubauer, 2007; Ingwall & Weiss, 2004).
CK-ның тотығу/нитрозативтік өзгерістері, кардиолипин зақымы және MtCK құралуының бұзылысы жүйені әлсірете алады. Тиолдар мен басқа бөліктер ортаға сезімтал; тексерілмеген аминқышқыл қалдығын негізгі себеп деуге болмайды. Энергетикалық қайта құрылу артық жүктеме, перфузия, Ca және нейрогуморальдық реттелумен әрекеттеседі.
PCr/АТФ — қорлардың салыстырмалы сигнал көрсеткіші, АТФ синтезінің жылдамдығы емес. Қанығуды тасымалдау әдісі CK ағынын бағалай алады, оған да модель мен өлшеу бақылауы қажет.
| Өлшем | Бағаланатын нәрсе | Өзі ғана дәлелдемейтін нәрсе |
|---|---|---|
| 31P-МРС PCr/АТФ | Фосфат қорларының салыстырмалы күйі | Митохондрияның дәл қуаты немесе ауру себебі |
| Алмасу арқылы CK ағыны | Модельдегі белгілі фосфотасымал | Барлық жолдың толық пайдалы АТФ өндірісі |
| Қандағы CK / CK-MB | Фермент шығуы мен зақым жағдайы | Жасушаішілік PCr қоры |
| Қоспаның клиникалық нәтижесі | Зерттелген топ пен режимдегі пайда | Маркердің кез келген өсуінің пайдасы |
Neubauer et al. (1997) дилатациялық кардиомиопатиясы бар 39 науқаста төмен PCr/АТФ пен болжам байланысын көрсетті. Бұл шағын когорта, әмбебап шекті көпорталықты тексеру емес. Кеңістіктік ажыратымдылық, қан сигналы, миокард әркелкілігі және әдіс әсер етеді. Байланыс қорды арттыратын қоспа өлімді азайтады деген дәлел емес.
Оттегі шектелсе, PCr АТФ-ты уақытша ғана сақтайды; таусылу жүктеме мен ишемия ауырлығына байланысты. Реперфузия тотығу стресі мен Ca бұзылысын қосады. Ішкі мембрананың өткізгіштік ауысуы mPTP және Bax/Bak сыртқы мембрана пермеабилизациясы MOMP — бөлек оқиғалар.
Тарихи ANT–MtCK–VDAC моделі mPTP-ның міндетті өзегі ретінде бекітілмеген. Генетикалық VDAC тәжірибелері оның болжанған міндетті қатысуынсыз да өткізгіштік ауысуы сақталатынын көрсетті (Baines et al., 2007). CK-ның мембрана тұрақтылығына ықпалы октамер барлық жасушада Bax/Bak-ты физикалық бөгейді дегенді дәлелдемейді.
CK тапшылығы модельдерінде митохондрия орналасуы және өзге энергетикалық жолдар бейімделеді. Бұл жүйе маңызын растайды әрі АТФ-тың жалғыз мүмкін жолы жоқ екенін көрсетеді. Көктамырлық PCr мен ауыз арқылы Cr — басқа араласулар; SLC6A8 Cr тасымалдайды, PCr-ді онымен теңестіруге болмайды. Тарихи қолдану жүрек жеткіліксіздігінің стандартты емі не қоспамен инфарктты азайтудың дәлелі емес.
Ми организм энергиясының елеулі бөлігін жұмсайды, бәрін синапстық берілуге емес. CK мен PCr ауыспалы сұраныс, ион градиенттері және пластикалылыққа көмектеседі. Митохондрия орналасуы, гликолиз және жасушааралық алмасу буферді толықтырады; жеке өсіндіде митохондрия болмауы басқа энергия жолдары жоқ дегенді білдірмейді.
Метаболизмдік стресстегі тәжірибелік қорғаныс нуклеотид пен мембрана тұрақтылығын қамтуы мүмкін. Ол uMtCK октамері Bax/Bak-ты тікелей әмбебап тежейді деген дәлел емес. Цитохром c босауын және каспаза жолдарын каспазаға тәуелсіз өте алатын AIF механизмдерінен ажырату керек.
Альцгеймер кезіндегі өлімнен кейінгі ми үлгілерінде BB-CK тотығу өзгерістері сипатталған (Aksenov et al., 2000). Олар энергетикалық бұзылысқа сай, бірақ CK жалғыз бастапқы себеп не ауыз арқылы Cr деменцияны қайтарады дегенді көрсетпейді. Хантингтонда экспрессия мен алмасу өзгерістері зерттеледі; бәріне бірдей CKB/CKMT1 басылу пайызын тағайындауға болмайды.
CREST-E ерте Хантингтон ауруында Cr функционалдық нашарлауды баяулататынын растамады (Hersch et al., 2017). Сенімді тәжірибелік гипотеза қор немесе нейробейнелеу ғана емес, клиникалық нәтиже арқылы тексеріледі.
AGAT/GATM, GAMT синтезі және SLC6A8 тасымалдаушысы ақауы — биохимиясы бөлек аурулар. GAMT ақауында гуанидинацетат (GAA) жиналады, SLC6A8 ақауында Cr өтуі бұзылады. Даму/сөйлеу кешеуілі, құрысу және қозғалыс бұзылысы әртүрлі үйлеседі. Протондық МРС-та Cr төмендеуі зерттеуге көмектеседі, бірақ диагноз биохимия мен генетиканы салыстыруды қажет етеді.
| Ақау | Емнің басты міндеті | Спорттық режим неге жарамайды |
|---|---|---|
| AGAT / GATM | Синтездің жетіспейтін өнімін толықтыру | Балалар режимі мен бақылауы жеке |
| GAMT | Cr толықтыру және GAA азайту | Cr жалғыз өзі уытты ізашарды жоймайды |
| SLC6A8 | Жасуша және ми тасымалының ақауы | Қандағы Cr өсуі миға жеткізуді кепілдемейді |
GeneReviews емнің ақауға қарай айырмасын және ерте диагноз маңызын сипаттайды. GAMT үшін GAA азайтатын арнайы шаралар, соның ішінде диета қолданылады. Жоғары емдік дозалар сау адамдарға кеңес емес; дозаны арттыру тасымалдаушы ақауын түзетеді деп уәде беруге болмайды (Mercimek-Andrews & Salomons, 2025 жаңартуы).
Синтез аминқышқыл алмасуын метилденумен байланыстырады:
Бүйрек пен бауыр ағзааралық синтезге маңызды, бірақ реакцияның жалғыз орны емес; мидағы жергілікті синтез де қажет. Тағам Cr береді, рацион мен бұлшықет массасы теңгерімді өзгертеді. Сырттан түскенде кері байланыс өз синтезін азайтады. SAM жұмсалуы қоспа метилденуді әмбебап түзетеді не оған қатысты ауруды емдейді дегенді дәлелдемейді (Wyss & Kaddurah-Daouk, 2000).
SLC6A8 — Na/Cl-тәуелді тасымалдаушы. Әдеттегі стехиометрия Cr-мен бірге екі Na және бір Cl жасушаға өтеді деп сипатталады; градиенттерді Na/K-АТФаза да сақтайды. Бұл екінші реттік белсенді тасымал, PCr-дің сол жүйемен пассивті өтуі емес. Жалпы қорын бос субстрат концентрациясымен алмастыруға болмайды (Christie, 2007).
Тағаммен болатын инсулин жауабы зерттелген жағдайда Cr ұсталуына әсер етуі мүмкін, бірақ көп қант қажет деген сөз емес. Na тәуелділігі қалыпты электролит кезінде қосымша тұз пайдасын білдірмейді. Қанығу мен бастапқы қор жауапты шектейді.
Ауыз арқылы моногидрат субстрат қолжетімділігін арттырады, бірақ сіңу, плазмадағы әсер және бұлшықетте ұсталу — бөлек кезеңдер. Ұсталмаған бөлік шығарылады; жоғары плазмалық шың CK пайдасын өлшемейді. Ми тосқауылы мен жергілікті синтез ми жауабын бұлшықеттен өзгеше етеді. Барлығында ми PCr-ын кепілді арттыратын бір режим жоқ (Béard & Braissant, 2010).
Hultman et al. (1996) бұлшықет қорын тез және біртіндеп арттыруды зерттеді. Бұл кинетиканы түсіндіреді, жүрек, бүйрек не тұқым қуалайтын ауруға ем тағайындамайды.
| Сау ересектерде зерттелген тәсіл | Әдеттегі режим | Мәні мен шегі |
|---|---|---|
| Жылдам қанығу | Шамамен 20 г/тәулік бөліп 5–7 күн; әрі қарай жиі 3–5 г/тәулік | Қор тез өзгереді; көтерімділік пен ұсталу әртүрлі |
| Біртіндеп қанығу | Шамамен 3 г/тәулік төрт аптадай | Жүктеу қажет емес; орташа ұқсастық әр адам жауабы бірдей деген сөз емес |
Дене массасы судан өсуі мүмкін. Бөліп ішу көтерімділікке көмектеседі, асқазан-ішек белгілерін түгел жоққа шығармайды. Мақсат пен популяция маңызды; режим балалардағы синтез ақауына, созылмалы бүйрек ауруына немесе жүрек декомпенсациясына автоматты көшірілмейді.
Cr моногидраты қайталанатын жоғары қарқынды күш пен жаттығу бейімделуінде жақсы зерттелген. PCr қоры қысқа жүктемеде АТФ регенерациясы мен жұмыс көлемін қолдай алады. Әсер міндетке, бастапқы қорға, дайындық пен бағдарламаға тәуелді; бәріне бірдей қуат өсімі не PCr қалпына келуінің тұрақты қысқаруы уәде етілмейді (Kreider et al., 2017).
«Алактаттық» — жол сипаттамасы, алғашқы секундта гликолиз мүлдем жоқ деген сөз емес. CK, гликолиз және тотығу үлесі өзгеріп, қатар жүреді. Күш жаттығуын қолдау кез келген ұзақ аэробтық тапсырманың нәтижесін жақсартуды дәлелдемейді.
Бастапқы майсыз масса өсімінің бір бөлігі су болуы мүмкін. Ұзақ бейімделу жаттығу стимулы мен тамақтануға байланысты. Жасуша гидратациясы, IGF-1/Akt/mTORC1, миогендік факторлар және сателлит жасушалары зерттеледі. Олардың өзгеруі Cr жаттығусыз әр адамның ақуыз синтезін тікелей әрі бірдей іске қосады деген дәлел емес. Сигнал, қысқа мерзімді масса және функциялық нәтиже бөлек көрсеткіш.
Есте сақтау мен зейін зерттеулері әркелкі; белгілі жағдайдағы ықтимал әсер әмбебап ноотроптық қасиетке тең емес. Ұйқысыздықтың 2024 жылғы шағын бақыланған зерттеуінде когнитивтік көрсеткіш пен мидағы жоғары энергиялы фосфаттар өзгерген. Нәтиже қайта тексеруді қажет етеді, күнделікті жоғары дозаны бекітпейді (Gordji-Nejad et al., 2024).
Гипоксия, ишемия және жарақат тәжірибелік модельдерде зерттелген. Жануар тінін қорғау адам ми жарақатын болдырмауды не ошақты бір пайызға азайтуды дәлелдемейді. Вегетариандық, жас және бастапқы күй жауапқа әсер етуі мүмкін, топтың әр мүшесіне жақсы жадыны кепілдемейді (Avgerinos et al., 2018; Roschel et al., 2021). CoQ10, полифенолдар және қауіпсіздік туралы талдау басқа митохондриялық гипотезаны салыстырады: жолды қолдау клиникалық нәтижені бөлек тексеруді талап етеді.
Cr және PCr өздігінен креатининге айналады. Қор, бұлшықет массасы мен рацион түзілуге әсер етеді; Cr-дің бір бөлігі өзгермей шығарылады. Тек креатинин арқылы шығарылады деу қате. Бүйректегі креатинин өңделуі сүзумен қатар түтікшелік секрецияны қамтиды.
Креатинин өсуі мүмкін, бірақ міндетті және бір мөлшерде емес. Есептік ШСЖ нақты сүзу дәл сондай төмендемесе де өзгеруі мүмкін. Еркін алынған сандар барлық жас пен жынысқа бірдей ШСЖ бермейді; кез келген өсімді зиянсыз деуге болмайды.
Бұлшықет не қоспа ықпалы күдік тудырса, дәрігер қабылдау тарихын, динамиканы, несеп пен қосымша маркерлерді салыстырады. KDIGO 2024 креатинин бағасының шегін және тиісті жағдайда цистатин C/біріктірілген есепті қарастырады. Ол бұлшықетке азырақ тәуелді, бірақ қабыну, қалқанша без күйі және глюкокортикоид ықпалы бар. Бір қалыпты нәтиже барлық жағдайда сүзгінің сақталғанын дәлелдемейді.
Poortmans & Francaux (1999) және Gualano et al. (2008) белгілі топтардың бүйрек маркерін зерттеді; барлық аталған еңбек бесжылдық рандомизацияланған сынақ емес. Зерттелген сау ересектердегі жақсы көтерімділік кез келген аурудағы кез келген дозаның қауіпсіздігін бекітпейді. Жалғыз бүйректі адамның бір бақылауы осы топтың ірі сынағына тең емес.
Бауыр көрсеткішіне де жағдай қажет: АСТ бұлшықет зақымында көтеріледі. Жаттығу, ауру, дәрі және өнім құрамы ескеріледі. Қоспа сапасы мен бөгде компоненттің жоқтығы Cr молекуласының қауіпсіздігінен бөлек.
Тағаммен ішу ыңғайлы болуы мүмкін, бірақ көп көмірсу, артық тұз және R-альфа-липой қышқылы әсердің міндетті шарты емес. АЛҚ дозасы мен тасымалдаушының орын ауыстыру уәдесі әлсіз жауап беретіндерге дәлелденген хаттама болмайды. Кофеин деректері режим мен көтерімділікке тәуелді; SERCA арқылы әмбебап антагонизм және міндетті 1–2 сағат аралық бекітілмеген.
Дәрі, сусыздану және қатар жүретін ауру тәуекел мен анализді өзгертеді. Ниацин, липидтер және қауіпсіздік мақаласында да осы қағида бар: биохимиялық синергия нақты үйлесім мен соңғы нәтижені бағалауды алмастырмайды.
CK жылдам өзгеретін сұранысты кеңістікте таралған АТФ синтезімен байланыстырады. MtCK октамері мен мембраналық орта байланысқа көмектеседі; цитозольдік формалар жергілікті фосфотасымалды атқарады. Қор шектеулі, реакция қайтымды, тін бірнеше энергетикалық жолды пайдаланады.
CK ағынын өлшеу, компартменттенуді қалпына келтіру және тасымал ақауында Cr жеткізу зерттеледі. Октамер тұрақтануы мен Cr аналогтары нақты араласудың клиникалық пайдасы және қауіпсіздігі көрсетілгенге дейін зерттеу бағыты болып қалады. Спорт, тұқым қуалайтын тапшылық, жүрек жеткіліксіздігі мен когнитивтік стресс әртүрлі сұрақ пен дәлелді қажет етеді.
Бұл — бар материалдың мақсатты баяндау редакциясы. Тақырып желілері сақталып, асыра айтылған механизмдік және клиникалық тұжырымдар нақтыланды. 1CRK/1QK1 құрылымы, жүрек болжамы, бұлшықет қанығуы, өткізгіштік ауысуы, CREST-E және ұйқысыздыққа қатысты қажетті бастапқы жазбалар қосымша салыстырылды; клиникалық шек үшін GeneReviews және KDIGO қолданылды. Бұл жүйелі іздеу, метаталдау, GRADE бағасы немесе сыртқы рецензия емес. Сызбалар тұжырымдық: сандық масштаб пен кешеннің атомдық құрылымы көрсетілмейді.
Жоқ. Ол фосфорил топтарын қайта бөледі. PCr АТФ-ты уақытша сақтайды, қорды толықтыруға метаболизм энергиясы қажет.
Жоқ. Ол ферменттің шығуы мен клиникалық жағдайды көрсетеді, жасушаішілік PCr немесе CK ағынын өлшемейді.
Болжамдық байланыс маркерді өсіру нәтиже жақсартатынын дәлелдемейді. Ауыз арқылы Cr мен көктамырлық PCr бөлек клиникалық дәлелді талап етеді.
Сау ересектерде біртіндеп қабылдау да қорды өсірген, бірақ баяу. Спорттық дозалар балалар мен ауруларға автоматты көшірілмейді.
Жоқ. Қоспа маркерге әсер етуі мүмкін, бірақ нақты бүйрек бұзылысы да мүмкін. Дәрігер динамика, несеп және қажет болса басқа әдістерді ескереді.