
Креатинкіназа і фосфокреатин: енергія та межі добавок
Як CK і MtCK поєднують мітохондрії з міофібрилами, насосами й синапсами: структура, оборотна хімія, транспорт креатину та межі спортивних, серцевих і неврологічних висновків.
Як CK і MtCK поєднують мітохондрії з міофібрилами, насосами й синапсами: структура, оборотна хімія, транспорт креатину та межі спортивних, серцевих і неврологічних висновків.
АТФ витрачається там, де працюють міозин, кальцієві насоси та синаптичні механізми, а значна частина окисного синтезу АТФ відбувається в мітохондріях. Креатинкіназна система поєднує ці процеси оборотним перенесенням фосфорильної групи між АТФ і креатином. Фосфокреатин (PCr) — мобільний носій і скінченний резерв для швидких змін потреби.
Стаття продовжує вихідний матеріал про CK–MtCK: від дифузії та структури ізоферментів до серця, мозку, транспорту креатину й клінічних обмежень. Метаболічна важливість системи не означає, що її посилення добавкою неодмінно лікує хворобу.
Цитозоль містить білки, мембрани й цитоскелет; концентрація в пробірці не описує доступність біля конкретної АТФази. Мітохондрії розподілені в клітині, тому енергія не мусить проходити всю довжину м'язового волокна. Проте відстань, геометрія та місцеві реакції впливають на забезпечення ділянок з високим навантаженням.
Для вільної одновимірної дифузії застосовують модель:
— коефіцієнт дифузії, — характерна відстань. Подвоєння відстані збільшує характерний час учетверо за незмінного . Це ілюстрація залежності, а не універсальний час постачання кардіоміоцита: межі, зв'язування й розміщення мітохондрій змінюють умови. Твердження про фізичну неможливість дифузії АТФ було б хибним.
Потік залежить від градієнта, а не лише загального пулу:
Сумарний АДФ охоплює зв'язаний і вільний нуклеотид; у кінетичному розрахунку вони не взаємозамінні. Універсальне твердження «95% АДФ зв'язано з актином» не потрібне для пояснення компартментації й не поширюється на всі тканини.
Енергія гідролізу АТФ залежить також від неорганічного фосфату, Mg і кислотності. Високе АТФ/АДФ саме по собі не гарантує достатнього потенціалу для SERCA чи іншого насоса. Місцева регенерація АТФ і відведення АДФ важливі навіть за порівняно сталого середнього АТФ.
Концепція внутрішньоклітинних енергетичних одиниць Saks та колег пов'язує мітохондрії, міофібрили, мембрани й фосфотрансферази. Різна позірна чутливість дихання до АДФ в ізольованих мітохондріях і проникних волокнах залежить від підготовки й організації тканини; це не універсальні клітинні константи. Регуляція VDAC, зокрема взаємодія з тубуліном, може обмежувати обмін, але не робить зовнішню мембрану цілком непроникною для АДФ.
Мітохондріальна CK (MtCK) у міжмембранному просторі використовує АТФ, експортований із матриксу через ANT, для утворення PCr. PCr досягає цитозольної CK біля споживача, де повертає фосфорильну групу АДФ. Креатин (Cr) доступний для зворотного шляху. Спряження доповнює дифузію нуклеотидів, гліколіз та аденілаткіназні мережі, а не скасовує їх (Wallimann et al., 1992; Dzeja & Terzic, 2003).
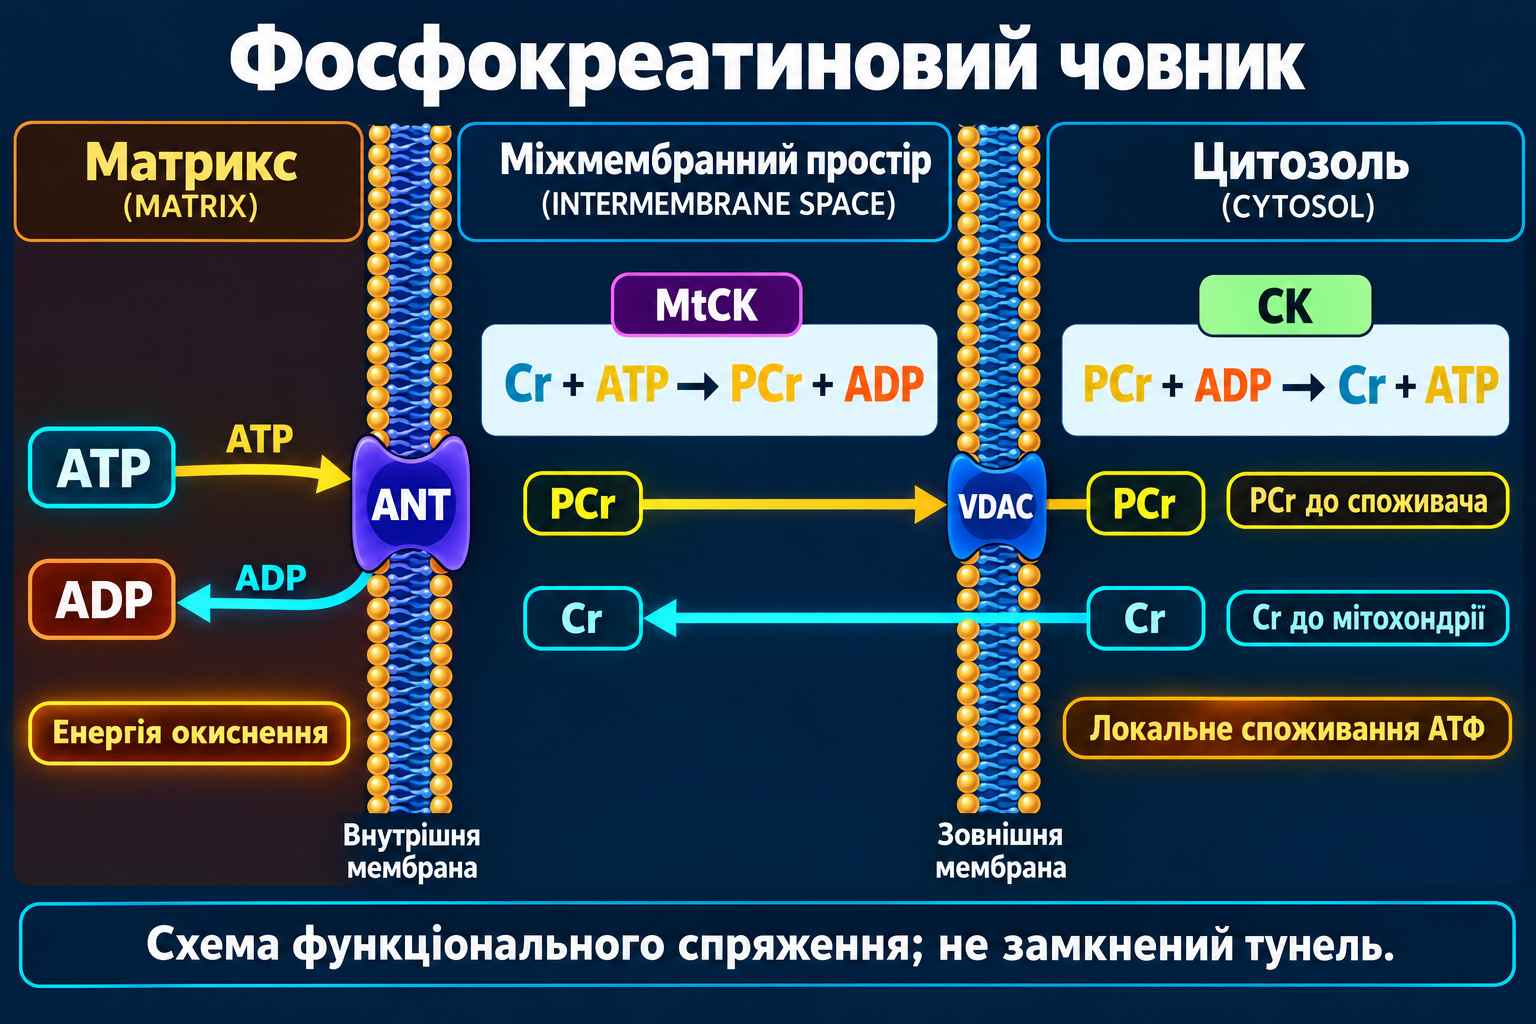
Функціональна схема: ANT у внутрішній мембрані, VDAC у зовнішній, MtCK між ними. Стрілки позначають переважний напрям обміну; замкнений молекулярний тунель не передбачається.
CK належить до гуанідинокіназ. Споріднені системи безхребетних використовують, наприклад, аргінін; еволюційна спорідненість не означає однакову енергетичну організацію всіх тварин. CKM і CKB людини кодують цитозольні субодиниці M і B. Їхні димери утворюють MM, MB і BB; розподіл залежить від тканини й розвитку.
MM-CK переважає у скелетному м'язі й важлива в серці; MB не є виключно серцевою. BB-CK працює в нервовій системі та інших тканинах. Міогенні регулятори впливають на CKM, але MyoD/міогенін і MEF2 не можна описувати як один чинник, що зв'язує однаковий E-box.
Мітохондріальні білки синтезуються як попередники з адресувальним сигналом та імпортуються до органели. Зріла MtCK працює в міжмембранному просторі, не матриксі. Шлях імпорту й процесинг слід відрізняти від кінцевої локалізації.
| Гілка | Гени / складання | Робоче розташування | Функціональний акцент |
|---|---|---|---|
| Цитозольна м'язова | CKM; MM, також MB із B | Міофібрили, ділянки біля насосів | Місцева регенерація АТФ при скороченні |
| Цитозольна B | CKB; BB, також MB із M | Нервові та інші клітини | Забезпечення змінної місцевої потреби |
| Саркомерна MtCK | CKMT2; димери й октамери | Міжмембранний простір м'язових мітохондрій | Зв'язок окисного синтезу з PCr |
| Убіквітарна MtCK | CKMT1A/CKMT1B; димери й октамери | Міжмембранний простір низки тканин | Просторова організація фосфотрансферу |
«М'язова» та «убіквітарна» описують експресію, не абсолютні межі. , питома активність і частки ізоферментів залежать від методу; одна таблиця констант для всіх клітин давала б хибну точність.
CK/CK-MB у крові відображає вихід ферменту й кліренс, не швидкість човника. Навантаження, ушкодження скелетного м'яза та макро-CK змінюють результат. Сучасне універсальне визначення інфаркту спирається передусім на серцевий тропонін із клінічним контекстом; CK-MB не замінює ці критерії (Thygesen et al., 2018).
Кристалографія Fritz-Wolf et al. (1996) і PDB 1CRK описують саркомерну MtCK курки з роздільністю 3,0 Å. Октамер утворений чотирма димерами; центральний отвір не є протонним каналом. Активні ділянки лежать у щілинах між доменами субодиниць.
Убіквітарну MtCK людини PDB 1QK1 досліджено з роздільністю 2,7 Å (Eder et al., 2000, Proteins). Це інша робота, ніж помилково наведена у вихідному тексті «brain-type» CK за 2,1 Å. Структура окремого ферменту не визначає атомну будову цілого ANT–MtCK–VDAC і не демонструє безперервний транспортний цикл.
Димери та октамери MtCK оборотно взаємоперетворюються:
Обидві форми можуть зберігати каталіз. Октамер важливий для мембранних взаємодій, але не є єдиною «увімкненою» формою. Субстрати, іонне середовище, ліпіди та окисні зміни впливають на складання. Аналоги перехідного стану, зокрема АДФ, Cr і нітрат, — біохімічні інструменти, не підстава для лікування нітратом.
Позитивно заряджені поверхні MtCK взаємодіють з негативними ліпідами, передусім кардіоліпіном внутрішньої мембрани. Експерименти підтримують зближення мембран і стабілізацію контактів, але не встановлюють універсальної константи чи однакової геометрії в кожній тканині. Кардіоліпін — компонент середовища, а не «провід» для фосфату.
ANT переносить нуклеотиди крізь внутрішню мембрану: АТФ виходить із матриксу, АДФ повертається. VDAC формує зовнішній канал для малих метаболітів, зокрема Cr і PCr. MtCK працює з міжмембранного боку цих потоків. Її не можна розташовувати в матриксі або з'єднувати з цитозольною поверхнею каналу через непроникну мембрану.
Функціональне каналювання означає переважне використання місцевого субстрату й рециклювання продукту. Близькість білків та обмежена дифузія можуть сприяти цьому, але не доводять проходження кожного АТФ крізь герметичний комплекс сталої стехіометрії. Історичні моделі корисні за розмежування експериментального спряження й буквальної інтерпретації (Schlattner et al., 2006).
За фіксованих pH та умов зв'язування Mg зручна біохімічна перетворена форма:
— безрозмірні активності, — газова стала, — абсолютна температура. Приблизні стандартні енергії гідролізу PCr і АТФ близько −43 і −31 кДж/моль пояснюють фосфорилювання АДФ за участю PCr. Це задані стандартні умови, не фактична енергія кожного компартмента. Стандартний член синтезу PCr додатний; місцеві активності можуть сприяти сумарній реакції.
Явна іонна реакція з Mg і потребує відповідної неперетвореної стандартної енергії та повного реакційного коефіцієнта. Додавання до поверх уже перетвореного двічі враховує pH. Константа через активності безрозмірна.
Для вибраних іонних форм регенерація АТФ із PCr споживає протон. Ефективна стехіометрія залежить від протонування й Mg; правило «один протон завжди» не універсальне. Буфер скінченний. Ацидоз не зводиться до «молочної кислоти»: важливі оборот АТФ, транспорт і буферні реакції. Дихальний ланцюг перекачує протони крізь внутрішню мембрану, а не просто нейтралізує їх між мембранами.
У випадковому Bi–Bi-механізмі субстрати можуть зв'язуватися в різному порядку, але перенесення відбувається в комплексі з обома. Mg координує нуклеотид; рухи доменів і петель формують геометрію та обмежують воду. Це підвищує ефективність, не означаючи бездоганної клітинної роботи чи однакового усіх ізоферментів.
За різкого збільшення витрат АТФ цитозольна CK використовує PCr та АДФ. Коли окисне утворення знову покриває потребу, PCr поповнюється. Часовий буфер згладжує коливання, просторовий човник розподіляє фосфорильний потенціал; функції пов'язані, але відмінні.
АДФ біля ANT може стимулювати дихання. Експериментальний ефект Cr підтримує спряження, не означаючи постійного максимального State 3 в організмі. Відновлення PCr залежить від кисню, перфузії, мітохондріальної потужності, pH і навантаження. PCr рухається за градієнтами й реакційними зв'язками, VDAC не є односпрямованою електричною помпою.
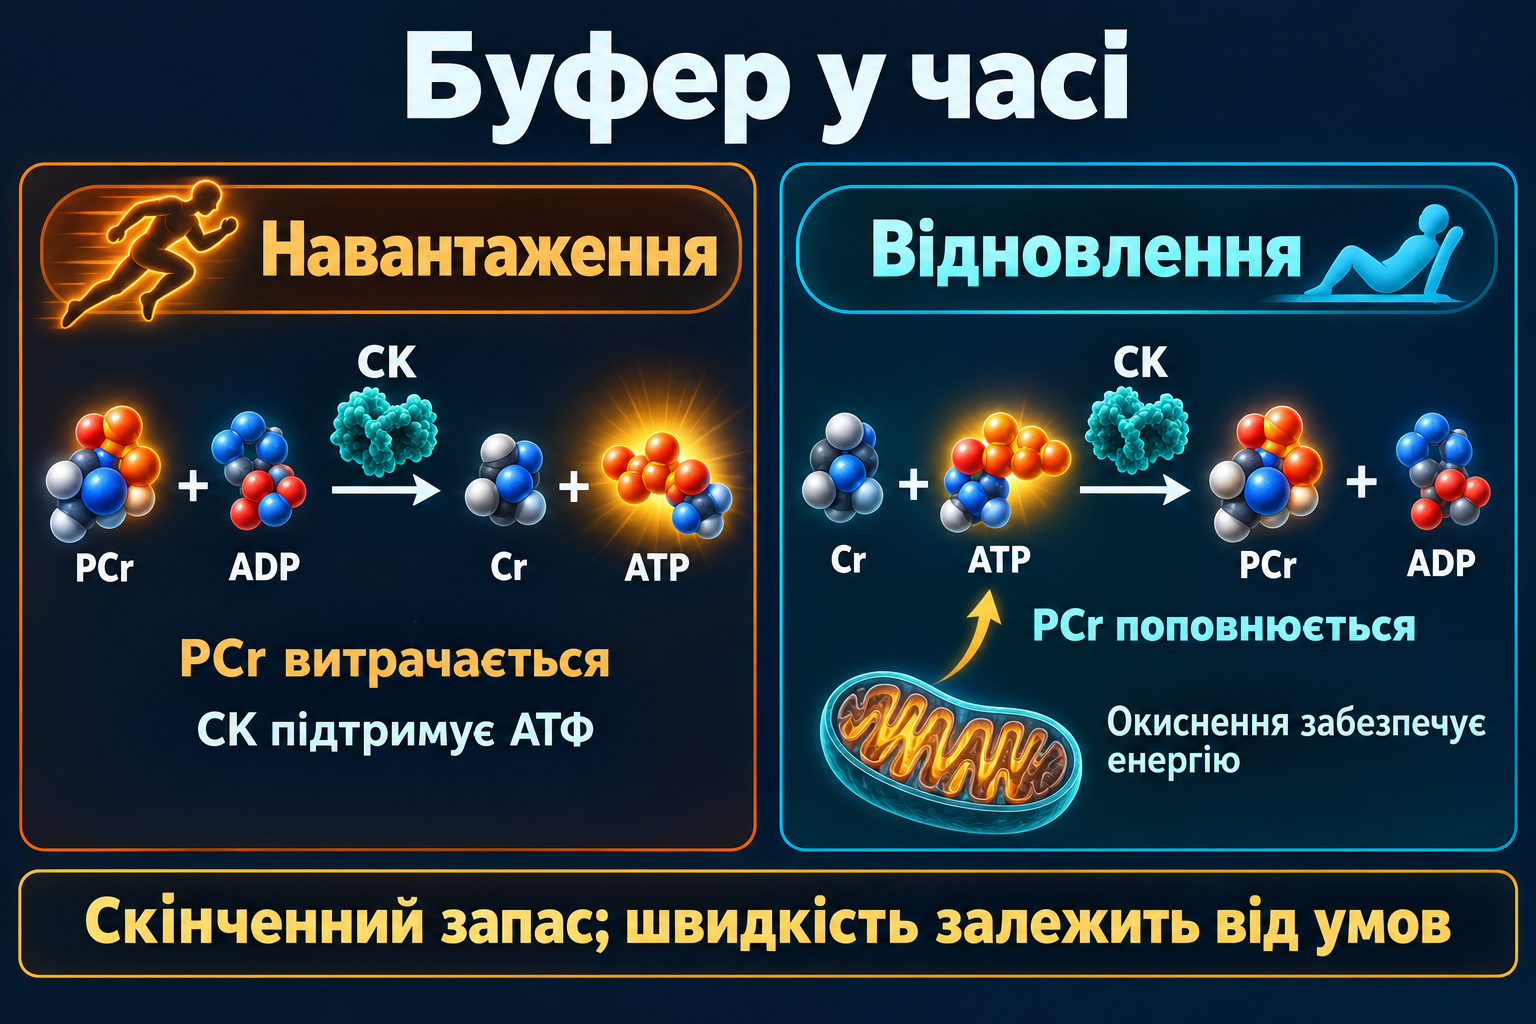
При навантаженні резерв витрачається для АТФ; при відновленні метаболічна енергія повертає фосфорильну групу Cr. Якісна схема не задає однакового часу для всіх м'язів. Молекулоподібні значки умовні, не перевірені атомні структури.
Взаємодія MM-CK з білками M-лінії, зокрема міомезином і M-білком, організує регенерацію АТФ поблизу скоротливої системи. АТФ потрібен для від'єднання міозину від актину й продовження циклу; АДФ впливає на кінетику. Близькість CK зменшує місцеві коливання, але не гарантує однакового АТФ/АДФ біля кожної головки.
SERCA повертає Ca до саркоплазматичного ретикулума: SERCA1a характерна для швидкого м'яза, SERCA2a для серця й повільного м'яза. Фосфотрансфер підтримує АТФ та потенціал роботи проти кальцієвого градієнта. Частка витрат і мінімальна вільна енергія залежать від тканини й умов; одне число не описує всі насоси.
Na/K-АТФаза підтримує градієнти збудливості, транспорту й Na/Ca-обмінника. Напрям останнього залежить від електрохімічних умов і може змінюватися. Потенціал мембрани формують насоси й провідності разом, не один CK-залежний процес.
CK забезпечує синаптичний оборот, перебудову актину та роботу насосів. V-АТФаза створює протонний градієнт у везикулах, яким користуються транспортери медіаторів. В астроцитах захоплення глутамату пов'язане з Na-градієнтом і Na/K-АТФазою. PCr покриває ці потреби разом із мітохондріальним АТФ та гліколізом. Пластичність і екзоцитоз не залежать лише від човника.
При серцевій недостатності змінюються Cr, PCr, активність ізоферментів і фосфотрансфер. PCr може знижуватися раніше або сильніше за АТФ: резерв виснажується, поки необхідний нуклеотид частково підтримується. Величина залежить від причини й стадії, не одного відсотка для всіх (Neubauer, 2007; Ingwall & Weiss, 2004).
Окисні й нітрозативні модифікації CK, ушкодження кардіоліпіну та складання MtCK можуть погіршувати систему. Тіоли та інші ділянки чутливі до середовища; неперевірений номер залишку не слід називати головною причиною декомпенсації. Ремоделювання взаємодіє з перевантаженням, перфузією, Ca та нейрогуморальною регуляцією.
PCr/АТФ описує відносні сигнали пулів, не швидкість синтезу АТФ. Перенесення насичення дозволяє оцінювати CK-потік, теж із моделлю та контролем вимірювання.
| Вимірювання | Що оцінює | Чого саме не доводить |
|---|---|---|
| PCr/АТФ на 31P-МРС | Відносний стан фосфатних пулів | Точну потужність мітохондрій або причину хвороби |
| CK-потік за обміном | Певний фосфотрансфер у моделі | Повне корисне утворення АТФ всіма шляхами |
| CK / CK-MB у крові | Вихід ферменту й контекст ушкодження | Внутрішньоклітинний резерв PCr |
| Добавка та клінічний результат | Користь у дослідженій групі й режимі | Користь будь-якого підвищення маркера |
Neubauer et al. (1997) пов'язали нижче PCr/АТФ з прогнозом у 39 пацієнтів із дилатаційною кардіоміопатією. Це мала когорта, не багатоцентрова валідація універсального порогу. Роздільність, сигнал крові, неоднорідність міокарда й техніка впливають на результат. Асоціація не доводить зниження смертності добавкою, що збільшує пул.
За нестачі кисню PCr підтримує АТФ тимчасово; виснаження залежить від навантаження й тяжкості ішемії. Реперфузія додає окисного стресу та порушень Ca. Перехід внутрішньомембранної проникності mPTP і зовнішня пермеабілізація Bax/Bak (MOMP) — різні події.
Історична модель ANT–MtCK–VDAC не є встановленим обов'язковим ядром mPTP. Генетичні експерименти показали збереження переходу без припущеної обов'язкової участі VDAC (Baines et al., 2007). Вплив CK на стійкість не доводить універсального фізичного блокування Bax/Bak октамером.
Моделі дефіциту CK показують адаптацію, зокрема розміщення мітохондрій та інші енергетичні шляхи. Вони підтверджують важливість і спростовують єдиний можливий маршрут АТФ. Внутрішньовенний PCr і пероральний Cr — різні втручання; SLC6A8 переносить Cr, не тотожно PCr. Історичне застосування не встановлює стандартного лікування недостатності чи доведеного зменшення інфаркту добавкою.
Мозок споживає значну частку енергії організму, не всю для синаптичної передачі. CK і PCr покривають змінну потребу, підтримують градієнти й пластичність. Мітохондріальне розміщення, гліколіз і міжклітинний обмін доповнюють буфер; шипик без мітохондрії не позбавлений інших джерел.
Експериментальний захист при стресі може включати підтримку нуклеотидів і мембран. Це не доводить прямого універсального пригнічення Bax/Bak октамером uMtCK. Цитохром c і каспазні шляхи слід відрізняти від механізмів AIF, які можуть бути незалежними від каспаз.
У посмертному мозку при Альцгеймері описано окисні зміни BB-CK (Aksenov et al., 2000). Вони сумісні з енергетичним порушенням, але не встановлюють CK єдиною первинною причиною або зворотність деменції пероральним Cr. При Гантінгтоні досліджують експресію й обмін, не однаковий відсоток пригнічення CKB/CKMT1 у всіх.
CREST-E не підтвердило уповільнення функціонального погіршення креатином при ранній хворобі Гантінгтона (Hersch et al., 2017). Переконлива експериментальна гіпотеза потребує перевірки клінічного результату, а не лише пулу чи нейровізуалізації.
Дефекти синтезу AGAT/GATM, GAMT і транспортера SLC6A8 — окремі хвороби. При GAMT накопичується гуанідиноацетат (GAA), при SLC6A8 порушений перенос Cr. Затримка розвитку й мовлення, судоми та рухові розлади поєднуються по-різному. Зниження Cr на протонній МРС допомагає обстеженню, але діагноз потребує зіставлення біохімії й генетики.
| Порушення | Основне лікувальне завдання | Чому не переносити спортивний режим |
|---|---|---|
| AGAT / GATM | Поповнити відсутній продукт синтезу | Дитячі режими й нагляд індивідуальні |
| GAMT | Поповнити Cr та зменшити GAA | Сам Cr не усуває токсичного попередника |
| SLC6A8 | Порушення клітинного й мозкового транспорту | Більше Cr у крові не гарантує доставку до мозку |
GeneReviews описує різні можливості лікування й важливість раннього діагнозу. При GAMT потрібні спеціалізовані заходи зниження GAA, зокрема дієтичні. Високі лікувальні дози не є порадою здоровим, а збільшення дози не обіцяє виправити транспортер (Mercimek-Andrews & Salomons, оновлення 2025).
Синтез поєднує амінокислоти й метилювання:
Нирки й печінка важливі для міжорганного синтезу, але не єдині місця реакцій; місцевий синтез важливий у мозку. Їжа постачає Cr, раціон і м'язова маса змінюють баланс. Зворотний зв'язок зменшує власний синтез при зовнішньому надходженні. Використання SAM не доводить універсальної корекції метилювання добавкою чи лікування відповідних хвороб (Wyss & Kaddurah-Daouk, 2000).
SLC6A8 — Na/Cl-залежний переносник. Типове спряження описують як Cr із двома Na та одним Cl у клітину; градієнти підтримує зокрема Na/K-АТФаза. Це вторинно активний транспорт, не пасивне проникнення PCr. Загальний пул не дорівнює вільному субстрату транспортера (Christie, 2007).
Інсулінова відповідь з їжею може впливати на утримання за досліджених умов, не означаючи потребу у великих порціях цукру. Залежність від Na не означає користь додаткової солі при нормальних електролітах. Насичення та вихідний пул обмежують відповідь.
Пероральний моногідрат підвищує доступність, але всмоктування, плазмова експозиція та утримання м'язом — різні етапи. Неутримана частина виводиться; високий пік не вимірює користі CK. Бар'єр і місцевий синтез роблять мозкову відповідь відмінною від м'язової. Єдиного режиму гарантованого підвищення PCr мозку для всіх немає (Béard & Braissant, 2010).
Hultman et al. (1996) дослідили швидке й поступове збільшення м'язового пулу. Це пояснює кінетику, не дає лікувального призначення при серцевій, нирковій чи спадковій хворобі.
| Підхід у здорових дорослих | Типовий режим | Значення й межа |
|---|---|---|
| Швидке насичення | Близько 20 г/добу порціями 5–7 днів; далі часто 3–5 г/добу | Швидша зміна пулу; переносимість та утримання різні |
| Поступове насичення | Близько 3 г/добу приблизно чотири тижні | Без завантаження; подібні середні результати не рівні однаковій відповіді кожного |
Маса може зростати через воду. Поділ порцій покращує переносимість, не виключаючи шлунково-кишкових симптомів. Мета й популяція важливі; режими не переносять автоматично на дітей з дефектом синтезу, хронічну хворобу нирок чи декомпенсацію серця.
Моногідрат Cr добре досліджений для повторних інтенсивних зусиль і тренувальної адаптації. Доступний PCr підтримує регенерацію АТФ у коротких навантаженнях та обсяг роботи. Відповідь залежить від завдання, пулу, тренованості й програми; не можна обіцяти однакову потужність або фіксоване скорочення відновлення PCr (Kreider et al., 2017).
«Алактатний» описує шлях, не цілковиту відсутність гліколізу в перші секунди. CK, гліколіз та окиснення працюють разом із мінливим внеском. Допомога силовому тренуванню не доводить покращення кожної тривалої аеробної роботи.
Раннє зростання безжирової маси частково може бути водою. Подальша адаптація залежить від стимулу й харчування. Досліджують гідратацію, IGF-1/Akt/mTORC1, міогенні чинники та сателітні клітини. Їхні зміни не доводять прямого однакового включення синтезу білка Cr без тренування. Сигнал, короткочасна маса й функціональний результат — різні показники.
Дослідження пам'яті й уваги неоднорідні; можливий ефект за певних умов не є універсальною ноотропною дією. Мале контрольоване дослідження позбавлення сну 2024 року виявило зміни когнітивних показників і високоенергетичних фосфатів мозку. Потрібне відтворення, не встановлено щоденного високодозового режиму (Gordji-Nejad et al., 2024).
Гіпоксію, ішемію й травму вивчають експериментально. Захист тваринної тканини не доводить профілактики ЧМТ людини чи однакового відсотка зменшення осередку. Вегетаріанство, вік і вихідний стан впливають, не гарантуючи покращення всім (Avgerinos et al., 2018; Roschel et al., 2021). Аналіз CoQ10, поліфенолів і безпеки показує іншу мітохондріальну гіпотезу: підтримка шляху потребує окремої перевірки результатів.
Cr і PCr спонтанно перетворюються на креатинін. Пул, м'язова маса й раціон впливають на утворення; частина Cr виводиться незміненою. Тож виняткове виведення через креатинін — хибне твердження. Ниркова обробка включає канальцеву секрецію поряд із фільтрацією.
Підвищення креатиніну можливе, не обов'язкове й не фіксоване. Розрахункова ШКФ може змінитися без такого самого падіння справжньої фільтрації. Довільні числа не дають однакової ШКФ для всіх віків і статей та не дозволяють визнати кожне підвищення доброякісним.
За можливого впливу м'язів чи добавки лікар зіставляє анамнез, динаміку, сечові показники та додаткові маркери. KDIGO 2024 пояснює обмеження креатинінових оцінок та відповідне використання цистатину C/комбінованої оцінки. Він менше залежить від м'язів, але реагує на запалення, тиреоїдний стан і глюкокортикоїди. Один нормальний результат не доводить збереження фільтра в кожній ситуації.
Poortmans & Francaux (1999) і Gualano et al. (2008) вивчали ниркові показники певних груп; не всі наведені роботи були п'ятирічними РКД. Добра переносимість у досліджених здорових не встановлює безпеку будь-якої дози при будь-якій хворобі. Один випадок з єдиною ниркою не дорівнює великому рандомізованому дослідженню.
Печінкові показники теж потребують контексту: АСТ зростає і при м'язовому ушкодженні. Важливі тренування, хвороби, ліки й склад продукту. Якість добавки й відсутність сторонніх компонентів відрізняються від безпеки молекули Cr.
Їжа може бути зручною, але великі порції вуглеводів, додаткова сіль та R-альфа-ліпоєва кислота не обов'язкові. Фіксовані дози АЛК і обіцянки транслокації транспортера не є доведеним протоколом для слабшої відповіді. Дані кофеїну залежать від режиму й переносимості; універсальний антагонізм через SERCA та обов'язкові 1–2 години не встановлені.
Ліки, зневоднення й супутні хвороби змінюють ризик та аналізи. Стаття про ніацин, ліпіди й безпеку пояснює той самий принцип: біохімічна синергія не замінює оцінки конкретного поєднання й кінцевої точки.
CK поєднує швидку потребу з просторово розподіленим синтезом АТФ. Октамерна організація MtCK і мембранне середовище допомагають спряженню; цитозольні форми забезпечують місцевий фосфотрансфер. Резерв скінченний, реакція оборотна, тканина використовує кілька шляхів.
Перспективи — вимірювання CK-потоку, відновлення компартментації та доставлення Cr при транспортних дефектах. Стабілізація октамера й аналоги Cr залишаються дослідницькими напрямами до перевірки клінічної користі та безпеки. Спорт, спадковий дефіцит, серцева недостатність і когнітивний стрес потребують різних питань і доказів.
Це цільова наративна редакція наявного матеріалу. Збережено його теми, уточнено перебільшені механістичні й клінічні твердження. Додатково зіставлено необхідні первинні записи про 1CRK/1QK1, серцевий прогноз, м'язове насичення, перехід проникності, CREST-E і позбавлення сну; GeneReviews та KDIGO використано для клінічних меж. Це не систематичний пошук, метааналіз, оцінка GRADE чи зовнішнє рецензування. Схеми концептуальні, без кількісного масштабу й атомної структури комплексу.
Ні. Реакція перерозподіляє фосфорильні групи. PCr тимчасово підтримує АТФ, а відновлення запасу потребує енергії обміну.
Ні. Вона відображає вихід ферменту й клінічний контекст, не внутрішньоклітинний PCr чи CK-потік.
Прогностичний зв'язок не доводить користі підвищення маркера. Пероральний Cr і внутрішньовенний PCr різні й потребують окремих доказів.
Поступовий прийом теж збільшував пул у здорових дорослих, але повільніше. Спортивні дози не переносять автоматично на дітей або хвороби.
Ні. Добавка може впливати на маркер, проте можливе й справжнє порушення функції нирок. Лікар оцінює динаміку, сечу й інші методи за потреби.