
Креатинкиназа и фосфокреатин: перенос энергии и пределы добавок
Как CK и MtCK связывают митохондрии с миофибриллами, насосами и синапсами; структура, обратимая химия, транспорт креатина и границы спортивных, сердечных и неврологических выводов.
Как CK и MtCK связывают митохондрии с миофибриллами, насосами и синапсами; структура, обратимая химия, транспорт креатина и границы спортивных, сердечных и неврологических выводов.
АТФ расходуется там, где работают миозин, кальциевые насосы и синаптические механизмы, а большая часть окислительного синтеза АТФ происходит в митохондриях. Креатинкиназная система связывает эти процессы обратимым переносом фосфорильной группы между АТФ и креатином. Фосфокреатин (PCr) одновременно служит мобильным носителем и конечным резервом для быстрых изменений потребности.
Эта статья продолжает исходный материал о цепи CK–MtCK: от диффузии и структуры изоферментов до сердца, мозга, транспорта креатина и клинических ограничений. Метаболическая важность системы не означает, что её усиление добавкой обязательно лечит заболевание.
Цитозоль содержит белки, мембраны и цитоскелет; концентрация вещества в пробирке не описывает его доступность у конкретной АТФазы. Митохондрии распределены внутри клетки, поэтому энергия не обязана проходить через всю длину мышечного волокна. Тем не менее расстояния, геометрия и локальные реакции влияют на снабжение участков с высокой нагрузкой.
Для свободной одномерной диффузии справедлива модель:
Здесь — коэффициент диффузии, — характерное расстояние. Удвоение расстояния увеличивает характерное время в четыре раза при неизменном . Это иллюстрация зависимости, а не расчёт универсального времени снабжения кардиомиоцита: реальные границы, связывание и расположение митохондрий меняют задачу. Утверждение, что диффузия АТФ физически невозможна, было бы неверным.
Поток зависит от градиента, а не только от общего пула:
Измеренный суммарный АДФ включает связанный и свободный нуклеотид. Они не взаимозаменяемы в кинетическом расчёте. Универсальная доля «95% АДФ связан с актином» не нужна для объяснения компартментации и не должна переноситься на все ткани.
Энергия гидролиза АТФ зависит также от неорганического фосфата, Mg и кислотности. Высокое отношение АТФ/АДФ само по себе не гарантирует достаточного потенциала для SERCA или другого насоса. Поэтому локальная регенерация АТФ и удаление АДФ имеют значение даже при сравнительно стабильном среднем уровне АТФ.
В работах Saks и коллег концепция внутриклеточных энергетических единиц связывает митохондрии, миофибриллы, мембраны и фосфотрансферазы. Различия кажущейся чувствительности дыхания к АДФ в изолированных митохондриях и проницаемых волокнах зависят от подготовки и тканевой организации; это не универсальные константы живой клетки. Регуляция VDAC, в том числе взаимодействием с тубулином, может ограничивать обмен, но не делает наружную мембрану абсолютно непроницаемой для АДФ.
Митохондриальная CK (MtCK) в межмембранном пространстве использует АТФ, экспортируемый из матрикса через ANT, для образования PCr. PCr достигает цитозольной CK у потребителя, где фосфорильная группа возвращается АДФ. Креатин (Cr) доступен для обратного пути. Это пространственное сопряжение дополняет диффузию нуклеотидов, гликолиз и аденилаткиназные сети, а не отменяет их (Wallimann et al., 1992; Dzeja & Terzic, 2003).
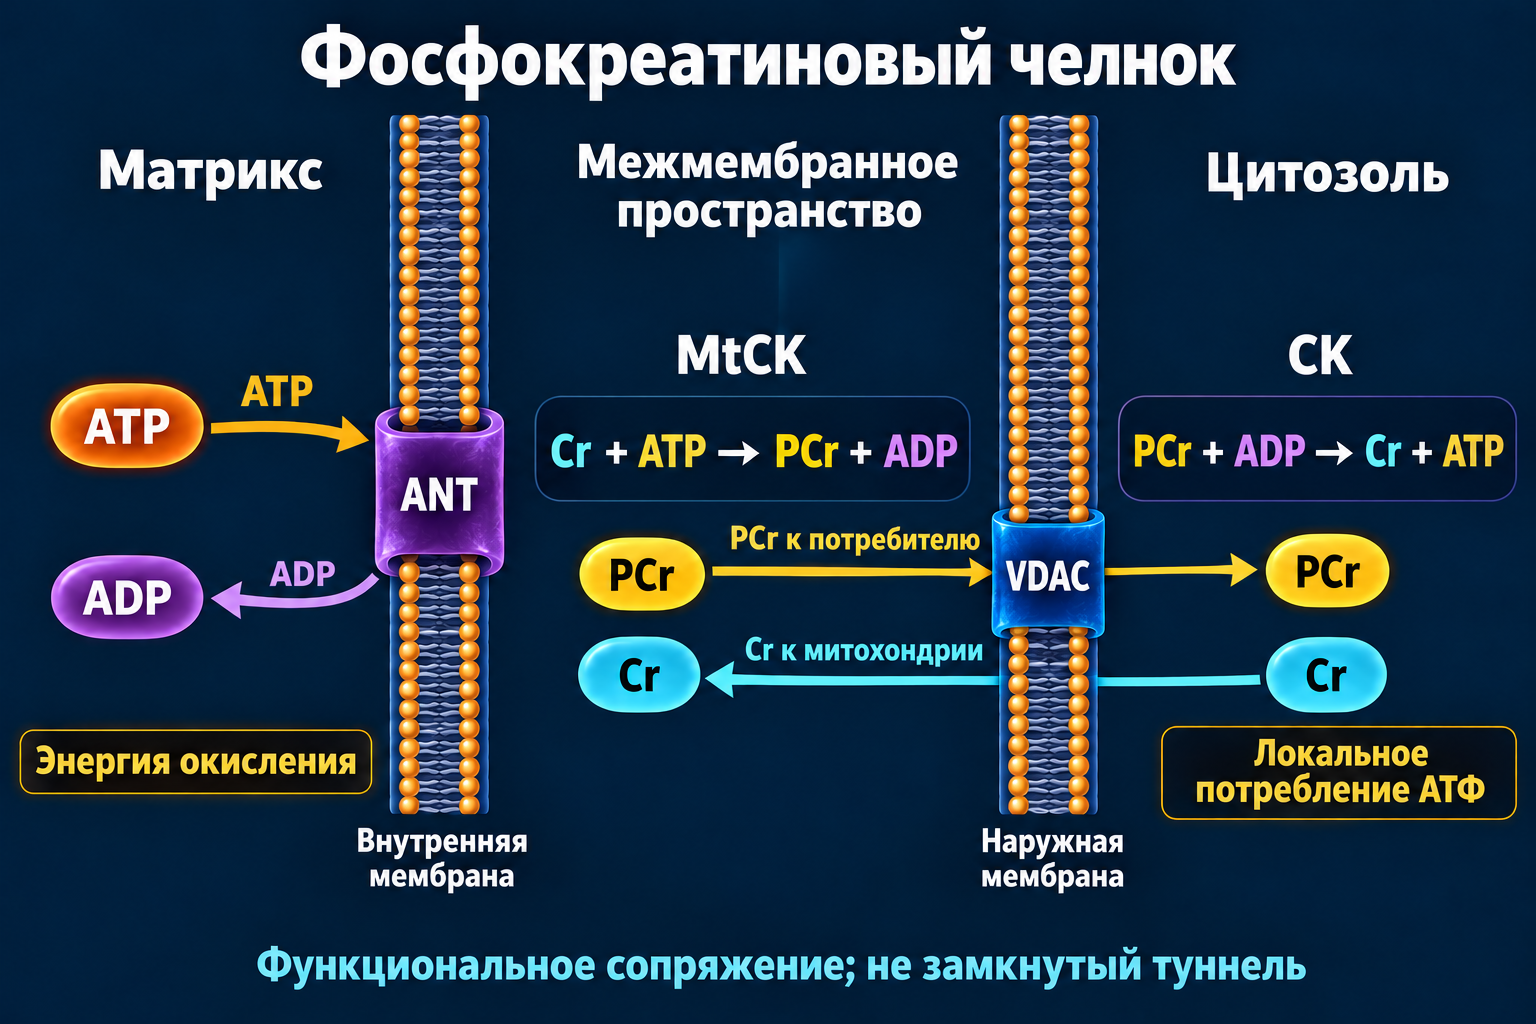
Функциональная схема: ANT расположен во внутренней мембране, VDAC — в наружной, MtCK — между ними. Стрелки обозначают преимущественное направление обмена при работающем челноке; замкнутый молекулярный туннель не предполагается.
Креатинкиназа относится к семейству гуанидинокиназ. Родственные системы беспозвоночных используют, например, аргинин; эволюционное родство не означает одинаковую организацию энергетики всех животных. У человека CKM и CKB кодируют цитозольные субъединицы M и B. Их димеры дают MM, MB и BB; распределение зависит от ткани и стадии развития.
MM-CK преобладает в скелетной мышце и важна в сердце; MB не является исключительно сердечным изоферментом. BB-CK работает в нервной системе и других тканях. Миогенные регуляторы влияют на экспрессию CKM, однако MyoD/миогенин и MEF2 нельзя описывать как один фактор, связывающий один и тот же E-box.
Митохондриальные белки синтезируются как предшественники с адресующим сигналом и импортируются в органеллу. Зрелая MtCK функционирует в межмембранном пространстве; это не матриксный фермент. Детальный маршрут импорта и процессинг предшественника не следует смешивать с конечной локализацией.
| Ветвь | Гены / сборка | Рабочее расположение | Функциональный акцент |
|---|---|---|---|
| Цитозольная мышечная | CKM; MM, также MB с B | Миофибриллы, участки около насосов | Локальная регенерация АТФ при сокращении |
| Цитозольная B | CKB; BB, также MB с M | Нервные и другие клетки | Снабжение переменной локальной нагрузки |
| Саркомерная MtCK | CKMT2; димеры и октамеры | Межмембранное пространство мышечных митохондрий | Связь окислительного синтеза с PCr |
| Убиквитарная MtCK | CKMT1A/CKMT1B; димеры и октамеры | Межмембранное пространство ряда тканей | Пространственная организация фосфотрансфера |
Названия «мышечная» и «убиквитарная» описывают характер экспрессии, а не абсолютные границы. Значения , удельной активности и доли изоферментов зависят от метода; единая таблица констант для всех клеток создала бы ложную точность.
Активность CK или CK-MB в крови отражает выход фермента и его клиренс, а не скорость челнока в мышце. Нагрузка, повреждение скелетной мышцы и макро-CK могут менять результат. Для диагностики повреждения миокарда современная универсальная дефиниция инфаркта опирается прежде всего на сердечный тропонин вместе с клиническим контекстом; CK-MB не заменяет эти критерии (Thygesen et al., 2018).
Кристаллографическая работа Fritz-Wolf et al. (1996) и запись PDB 1CRK описывают саркомерную MtCK курицы при разрешении 3,0 Å. Октамер построен из четырёх димеров; его центральное отверстие не является протонным каналом. Активные участки расположены в щелях между доменами субъединиц.
Человеческая убиквитарная MtCK в PDB 1QK1 исследована при 2,7 Å (Eder et al., 2000, Proteins). Это другая работа, чем ошибочно приведённая в исходнике ссылка на «brain-type» CK при 2,1 Å. Отдельная структура фермента не определяет атомную организацию всей системы ANT–MtCK–VDAC и не демонстрирует непрерывный транспортный цикл.
Между димерами и октамерами MtCK существует обратимое равновесие:
Обе формы могут сохранять каталитическую активность. Октамерная организация имеет особое значение для взаимодействия с мембранами; её не следует называть единственной «включённой» формой фермента. Субстраты, ионная среда, мембранные липиды и окислительные изменения могут менять сборку. Аналоги переходного состояния, включая комбинации АДФ, креатина и нитрата, являются инструментами биохимии, а не основанием для терапии нитратом.
Положительно заряженные поверхности MtCK взаимодействуют с отрицательно заряженными липидами, прежде всего кардиолипином внутренней мембраны. Модель сближения мембран и стабилизации контактных участков поддерживается экспериментами, но универсальная константа связывания и одинаковая геометрия контакта для каждой ткани не установлены. Кардиолипин здесь является компонентом мембранной среды, а не «проводом», по которому бежит фосфат.
ANT переносит адениновые нуклеотиды через внутреннюю мембрану: АТФ выходит из матрикса, АДФ возвращается. VDAC образует канал наружной мембраны, через который доступны малые метаболиты, включая Cr и PCr. MtCK располагается с межмембранной стороны этих потоков. В схеме нельзя ставить её в матрикс или связывать с цитозольной поверхностью канала через непроницаемую мембрану.
Функциональное каналирование означает преимущественное использование локально доступного субстрата и рециклирование продукта. Оно может включать близость белков и ограниченную диффузию; оно не доказывает, что каждая молекула АТФ проходит через физически герметичный комплекс фиксированной стехиометрии. Исторические модели контактов полезны, если отделять экспериментальное сопряжение от такой буквальной интерпретации (Schlattner et al., 2006).
При фиксированных pH и условиях связывания Mg реакцию удобно записывать в биохимической преобразованной форме:
— безразмерные активности, — газовая постоянная, — абсолютная температура. Приблизительные учебные значения стандартной энергии гидролиза PCr и АТФ около −43 и −31 кДж/моль объясняют, почему PCr способен фосфорилировать АДФ. Они относятся к заданным стандартным условиям, а не к фактической энергии в каждом компартменте. Для направления синтеза PCr стандартный член положителен; локальные активности могут сделать суммарную реакцию выгодной.
Если использовать явную ионную реакцию с Mg и , нужно использовать соответствующую непреобразованную стандартную энергию и полный реакционный коэффициент. Добавление в поверх уже преобразованного дважды учитывает pH. Равновесная константа, записанная через активности, безразмерна.
Для выбранных ионных форм регенерация АТФ из PCr сопровождается потреблением протона. Эффективная протонная стехиометрия зависит от протонирования и связывания Mg; это не универсальное правило «один протон в любых условиях». Буферный эффект конечен. Ацидоз при нагрузке нельзя свести к «молочной кислоте»: баланс связан с оборотом АТФ, переносом и буферными реакциями. Дыхательная цепь перекачивает протоны через внутреннюю мембрану, а не просто нейтрализует протоны межмембранного пространства.
В случайном Bi–Bi-механизме два субстрата могут связываться в разном порядке, но фосфорильный перенос происходит в ферментном комплексе с обоими субстратами. Mg координирует нуклеотид; движения доменов и петель формируют каталитическую геометрию и ограничивают доступ воды. Это повышает эффективность переноса, но не означает стопроцентную эффективность клетки или одинаковый всех изоферментов.
При резком увеличении расхода АТФ цитозольная CK использует PCr и АДФ. Когда окислительное образование АТФ снова покрывает спрос, PCr восполняется. Временной буфер сглаживает колебания, а пространственный челнок распределяет фосфорильный потенциал; эти функции связаны, но различаются.
Образование АДФ возле ANT может стимулировать митохондриальное дыхание. Экспериментальное усиление дыхания при добавлении креатина поддерживает функциональное сопряжение, однако не означает постоянное максимальное состояние State 3 в организме. Восстановление PCr зависит от кислорода, кровоснабжения, митохондриальной мощности, pH и нагрузки. PCr движется по градиентам и реакционным связям; он не «выстреливается» VDAC как однонаправленной электрической помпой.
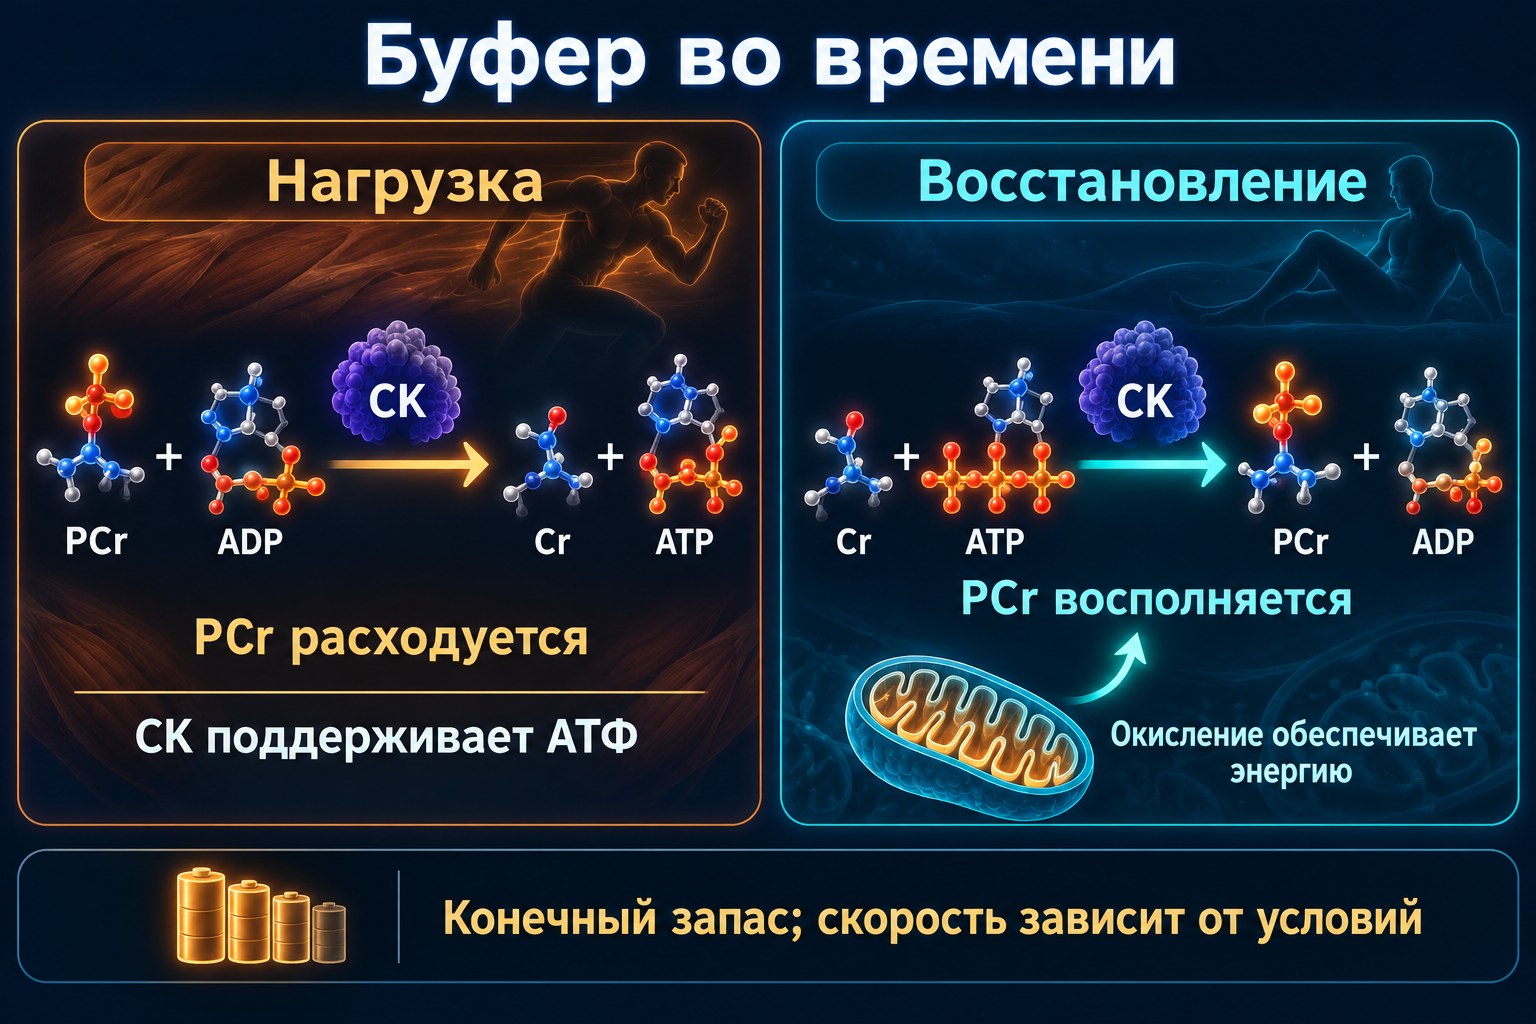
При нагрузке резерв расходуется на регенерацию АТФ; при восстановлении метаболическая энергия возвращает фосфорильную группу к Cr. Схема качественная и не задаёт одинаковое время восстановления для всех мышц. Молекулоподобные значки условны и не изображают проверенные атомные структуры.
Взаимодействие MM-CK с белками M-линии, включая миомезин и M-белок, помогает организовать регенерацию АТФ рядом с сократительной системой. АТФ необходим для отделения миозина от актина и продолжения цикла; АДФ влияет на кинетику. Близость CK уменьшает локальные колебания нуклеотидов, но не гарантирует одно и то же отношение АТФ/АДФ у каждой головки миозина.
SERCA возвращает Ca в саркоплазматический ретикулум: SERCA1a характерна для быстрой мышцы, SERCA2a — для сердца и медленной мышцы. Фосфотрансфер поддерживает доступность АТФ и энергетический потенциал, необходимый для работы против кальциевого градиента. Доля затрат на SERCA и минимальная свободная энергия зависят от ткани и условий; одно число не описывает все насосы.
Na/K-АТФаза поддерживает ионные градиенты, от которых зависят возбудимость, транспорт и работа Na/Ca-обменника. Направление последнего определяется электрохимическими условиями и может меняться. Мембранный потенциал создаётся совместно насосами и проводимостями мембраны, поэтому его нельзя приписать одному CK-зависимому процессу.
В нервных клетках CK участвует в обеспечении синаптического оборота, актиновой перестройки и работы насосов. V-АТФаза создаёт протонный градиент в везикулах; транспортёры нейромедиаторов используют этот градиент. В астроцитах захват глутамата связан с Na-градиентом и Na/K-АТФазой. PCr помогает покрывать такие нагрузки вместе с митохондриальным АТФ и гликолизом. Пластичность и экзоцитоз не зависят исключительно от одного «челнока».
При сердечной недостаточности изменяются содержание креатина, резерв PCr, активность изоферментов и скорость фосфотрансфера. PCr может уменьшаться раньше или сильнее АТФ: буфер истощается, пока концентрация необходимого нуклеотида частично поддерживается. Величина изменений зависит от причины и стадии болезни, а не подчиняется одному проценту для всех пациентов (Neubauer, 2007; Ingwall & Weiss, 2004).
Окислительные и нитрозативные модификации CK, повреждение кардиолипина и нарушения сборки MtCK могут ухудшать систему. Тиольные группы и другие участки белка чувствительны к среде; нельзя без проверки назначать один номер остатка основной причиной декомпенсации. Энергетическое ремоделирование взаимодействует с перегрузкой, перфузией, кальциевым обменом и нейрогуморальной регуляцией.
Отношение PCr/АТФ — показатель относительных сигналов пулов; оно не равно скорости синтеза АТФ. Методы переноса насыщения могут оценивать CK-поток, но их интерпретация также требует модели и контроля измерения.
| Измерение | Что позволяет оценить | Чего оно само не доказывает |
|---|---|---|
| PCr/АТФ на 31P-МРС | Относительное состояние фосфатных пулов | Точную мощность митохондрий или причину болезни |
| CK-поток методами обмена | Скорость определённого фосфотрансфера в модели | Полную полезную выработку АТФ всеми путями |
| CK / CK-MB в крови | Выход фермента и клинический контекст повреждения | Внутриклеточный резерв PCr |
| Эффект добавки на исходы | Пользу в изученной популяции и режиме | Пользу любого повышения метаболического маркера |
В исследовании Neubauer et al. (1997) снижение PCr/АТФ было связано с прогнозом у 39 пациентов с дилатационной кардиомиопатией. Это небольшая когорта, не многоцентровая валидация универсального диагностического порога. Пространственное разрешение, примесь сигнала крови, неоднородность миокарда и методика влияют на показатель. Ассоциация не устанавливает, что добавка, повысившая пул, снизит смертность.
При ограничении кислорода PCr поддерживает АТФ лишь временно; скорость истощения зависит от нагрузки и тяжести ишемии. Реперфузия добавляет риски окислительного стресса и нарушения Ca. Внутримембранный переход проницаемости (mPTP) и наружномембранная пермеабилизация Bax/Bak (MOMP) — разные события.
Историческая модель ANT–MtCK–VDAC не является установленным обязательным ядром mPTP. Генетические эксперименты с VDAC показали, что переход проницаемости может сохраняться без предполагаемого обязательного участия этого канала (Baines et al., 2007). Влияние CK на мембранную устойчивость не доказывает, что октамер физически блокирует Bax/Bak во всех клетках.
Модели дефицита CK демонстрируют адаптацию, включая изменение расположения митохондрий и других энергетических путей. Они подтверждают важность системы и одновременно опровергают представление о единственном возможном маршруте АТФ. Внутривенный PCr и пероральный креатин — разные вмешательства; SLC6A8 переносит Cr, а не тождественно PCr. Историческое применение PCr не устанавливает стандартное лечение сердечной недостаточности или доказанное уменьшение инфаркта добавкой.
Мозг расходует значительную долю энергии организма, но не вся эта энергия относится к синаптической передаче. CK и PCr участвуют в покрытии переменного спроса, поддержании ионных градиентов и пластичности. Митохондриальное размещение, гликолиз и обмен между клетками дополняют этот буфер; отсутствие митохондрии в отдельном шипике не означает отсутствие других путей энергии.
Экспериментальная защита при метаболическом стрессе может включать поддержку нуклеотидов и устойчивости мембран. Она не доказывает универсального прямого запрета Bax/Bak октамером uMtCK. Высвобождение цитохрома c и каспазные пути следует отличать от механизмов AIF, которые могут протекать независимо от каспаз.
В посмертных образцах мозга при болезни Альцгеймера описаны окислительные изменения BB-CK (Aksenov et al., 2000). Они совместимы с энергетическим нарушением, но не устанавливают CK как единственную исходную причину и не доказывают обратимость деменции пероральным креатином. При болезни Хантингтона изучаются нарушения экспрессии и энергетического обмена, однако их нельзя свести к одному одинаковому проценту подавления CKB/CKMT1 у всех пациентов.
Клиническое исследование CREST-E не подтвердило замедление функционального ухудшения креатином при ранней болезни Хантингтона (Hersch et al., 2017). Такой результат особенно важен: убедительная экспериментальная гипотеза требует проверки клинического исхода, а не только изменений пула или нейровизуализации.
Дефекты синтеза AGAT/GATM и GAMT и дефект транспортёра SLC6A8 — самостоятельные заболевания с разной биохимией. При GAMT накапливается гуанидиноацетат (GAA); при SLC6A8 нарушен перенос Cr. Задержка развития и речи, судороги и двигательные нарушения встречаются в разных сочетаниях. Снижение сигнала Cr на протонной МРС помогает обследованию, но диагноз требует сопоставления биохимии и генетики.
| Нарушение | Главная задача лечения | Почему нельзя перенести спортивный режим |
|---|---|---|
| AGAT / GATM | Восполнение отсутствующего продукта синтеза | Педиатрические режимы и наблюдение индивидуальны |
| GAMT | Восполнение Cr и снижение GAA | Одного Cr недостаточно для устранения токсичного предшественника |
| SLC6A8 | Проблема клеточного и мозгового транспорта | Повышение Cr в крови не гарантирует его доставку в мозг |
Согласно GeneReviews, возможности лечения различаются по дефекту; ранняя диагностика существенна. При GAMT применяются специализированные меры снижения GAA, включая диетические вмешательства. Высокие лечебные дозы для этих заболеваний нельзя превращать в рекомендацию здоровому человеку, а дефект транспортёра нельзя обещать исправить простым увеличением дозы (Mercimek-Andrews & Salomons, обновление 2025).
Синтез Cr связывает обмен аминокислот с метилированием:
Почки и печень важны для межорганного синтеза, но не являются единственными местами соответствующих реакций; локальный синтез важен и в мозге. Пища также поставляет Cr, причём рацион и мышечная масса меняют баланс. Обратная связь снижает собственный синтез при поступлении извне. Использование SAM не доказывает, что добавка универсально исправляет метилирование или лечит связанное с ним заболевание (Wyss & Kaddurah-Daouk, 2000).
SLC6A8 — Na/Cl-зависимый переносчик. Типовую сопряжённую стехиометрию описывают как Cr с двумя Na и одним Cl внутрь клетки; градиенты поддерживаются, в частности, Na/K-АТФазой. Это вторично активный перенос, а не пассивное проникновение PCr через ту же систему. Общий пул нельзя использовать как концентрацию свободного субстрата транспортёра (Christie, 2007).
Инсулиновый ответ при совместном приёме пищи может влиять на удержание Cr в изученных условиях, но из этого не следует необходимость больших порций сахара. Зависимость транспорта от Na не означает, что дополнительная соль усилит эффект у человека с нормальным электролитным балансом. Насыщение и исходный тканевой пул ограничивают ответ.
Пероральный моногидрат Cr повышает доступность субстрата, но всасывание, плазменная экспозиция и удержание мышцей — разные этапы. Неудержанная часть может выводиться; высокий пик в плазме сам по себе не измеряет пользу CK. Транспорт через гематоэнцефалический барьер и локальный синтез делают мозговой ответ отличным от мышечного. Единого режима, который гарантированно повышает мозговой PCr у каждого человека, нет (Béard & Braissant, 2010).
В работе Hultman et al. (1996) исследовали быстрый и постепенный способы увеличения мышечного пула. Это основание для понимания кинетики, а не лечебное назначение при сердечной, почечной или наследственной болезни.
| Подход в исследованиях здоровых взрослых | Типичный режим | Интерпретация и предел |
|---|---|---|
| Быстрое насыщение | Около 20 г/сут, разделённых на порции, 5–7 дней; затем часто 3–5 г/сут | Быстрее меняет мышечный пул; переносимость и удержание различаются |
| Постепенное насыщение | Около 3 г/сут примерно четыре недели | Не требует загрузки; сходный средний итог не означает одинаковый ответ всех участников |
Масса тела может увеличиваться из-за воды; разделение порций помогает переносимости, но не исключает желудочно-кишечных симптомов. Режим зависит от цели и популяции. Его нельзя автоматически переносить на детей с дефицитом синтеза Cr, пациентов с хронической болезнью почек или людей с декомпенсацией сердца.
Моногидрат Cr имеет хорошо изученное применение в повторных интенсивных усилиях и тренировочной адаптации. Увеличение доступного пула PCr может поддерживать регенерацию АТФ в коротких нагрузках и объём работы. Эффект зависит от задачи, исходного пула, тренированности и программы; нельзя обещать каждому одинаковый прирост мощности или фиксированное сокращение времени восстановления PCr (Kreider et al., 2017).
«Алактатный» описывает энергетический путь, а не полное отсутствие гликолиза в первые секунды. CK, гликолиз и окисление участвуют совместно с меняющимся вкладом. Поддержка силовой тренировки не эквивалентна доказанному повышению результата любой длительной аэробной нагрузки.
Рост безжировой массы в начале приёма может частично отражать воду. Более длительная адаптация зависит от тренировочного стимула и питания. В экспериментах обсуждаются клеточная гидратация, IGF-1/Akt/mTORC1, миогенные факторы и клетки-сателлиты. Их изменения не доказывают, что Cr напрямую и одинаково включает синтез мышечного белка у каждого человека без тренировки. Важно отличать сигнальный механизм, краткосрочную массу и функциональный результат.
Исследования памяти и внимания неоднородны; возможный эффект в определённых условиях не равен универсальному ноотропному действию. В небольшом контролируемом исследовании депривации сна 2024 года наблюдались изменения когнитивных показателей и церебральных высокоэнергетических фосфатов. Этот результат требует воспроизведения и не устанавливает повседневный высокодозный режим (Gordji-Nejad et al., 2024).
Гипоксия, ишемия и травматическое повреждение изучались в экспериментальных моделях. Защита ткани животного не доказывает предотвращение человеческой ЧМТ или одинаковое уменьшение очага на заданный процент. Вегетарианство, возраст и исходный статус могут влиять на ответ, но не гарантируют улучшение памяти всем представителям группы (Avgerinos et al., 2018; Roschel et al., 2021). Для сравнения с другой митохондриальной гипотезой полезен разбор CoQ10, полифенолов и безопасности: поддержка биохимического пути требует отдельной проверки исходов.
Cr и PCr подвергаются спонтанному превращению в креатинин. Пул, мышечная масса и рацион влияют на его образование; часть поступившего Cr также выводится в неизменённом виде. Поэтому утверждение об «исключительном» выведении только через креатинин неверно. Почечная обработка креатинина включает не только фильтрацию, но и канальцевую секрецию.
Повышение креатинина при приёме Cr возможно, но не обязательно и не имеет одной фиксированной величины. Оно может изменять расчётную СКФ без соответствующего падения истинной фильтрации. Нельзя из произвольных чисел креатинина выводить одинаковую СКФ для всех возрастов и полов или объявлять любое повышение доброкачественным.
При подозрении на влияние мышечной массы или добавки врач сопоставляет историю приёма, динамику, мочевые показатели и дополнительные маркеры. KDIGO 2024 рассматривает ограничения креатининовых расчётов и использование цистатина C/комбинированной оценки в соответствующих условиях. Цистатин C менее зависит от мышечной массы, однако на него влияют другие факторы, включая воспаление, тиреоидный статус и глюкокортикоиды. Нормальный одиночный показатель не «доказывает сохранность фильтра» во всех клинических ситуациях.
Работы Poortmans & Francaux (1999) и Gualano et al. (2008) изучали почечные показатели в определённых группах. Их нельзя объединять в утверждение, что все перечисленные работы были пятилетними РКИ. Хорошая переносимость у изученных здоровых взрослых не устанавливает безопасность любой дозы при любой болезни. Единичное наблюдение человека с одной почкой не равно крупной рандомизированной проверке этой популяции.
Печёночные показатели также требуют контекста: АСТ может повышаться при мышечном повреждении. При изменении анализов нужно учитывать тренировку, сопутствующую болезнь, лекарства и состав продукта. Качество добавки и отсутствие посторонних компонентов отличаются от безопасности самой молекулы Cr.
Совместный приём с пищей может быть удобен, но большие углеводные порции, дополнительная соль и R-альфа-липоевая кислота не являются обязательными условиями эффективности. Фиксированные дозы АЛК и обещание транслокации транспортёра нельзя превращать в доказанный протокол для «неответчиков». Данные о кофеине и Cr зависят от режима и переносимости; универсальный антагонизм через SERCA и обязательный интервал 1–2 часа не установлены.
Препараты, обезвоживание и сопутствующие болезни могут менять клинический риск и интерпретацию анализов. Полезный принцип для комбинаций обсуждается также в статье о ниацине, липидах и безопасности: биохимическая синергия не заменяет оценку конкретного сочетания и конечной точки.
CK связывает быстро меняющийся спрос с пространственно распределённым синтезом АТФ. Октамерная организация MtCK и мембранная среда помогают сопряжению; цитозольные изоферменты обеспечивают локальный фосфотрансфер. При этом резерв конечен, реакция обратима, а ткань использует несколько энергетических путей.
Перспективы включают измерение CK-потока, восстановление компартментации и поиск способов доставки Cr при транспортных дефектах. Стабилизация октамера и аналоги Cr остаются исследовательскими направлениями, пока конкретные вмешательства не показывают клиническую пользу и безопасность. Для спорта, наследственного дефицита, сердечной недостаточности и когнитивного стресса нужны разные вопросы и разные доказательства.
Это целевая повествовательная редакция существующего материала. Сохранены его тематические линии; уточнены преувеличенные механистические и клинические утверждения. Дополнительно сверены необходимые первичные записи по структурам 1CRK/1QK1, сердечному прогнозу, режимам мышечного насыщения, переходу проницаемости, CREST-E и исследованию депривации сна; для клинических ограничений использованы GeneReviews и KDIGO. Это не систематический поиск, не метаанализ, не оценка GRADE и не внешнее рецензирование. Схемы концептуальные, без количественного масштаба и без изображения атомной структуры комплекса.
Нет. Реакция перераспределяет фосфорильные группы. PCr помогает временно поддерживать АТФ, а восстановление резерва требует энергии обмена.
Нет. Этот анализ отражает выход фермента и клинический контекст. Он не измеряет внутриклеточный PCr или CK-поток.
Прогностическая ассоциация не доказывает, что повышение маркера улучшит исход. Пероральный Cr и внутривенный PCr различаются и требуют отдельных клинических доказательств.
В исследованиях здоровых взрослых постепенный приём также повышал мышечный пул, но медленнее. Дозы для спорта не переносятся автоматически на заболевания или детей.
Нет. Добавка может влиять на маркер, однако истинное нарушение функции почек тоже возможно. Врач учитывает динамику, мочевые показатели и при необходимости другие методы оценки.