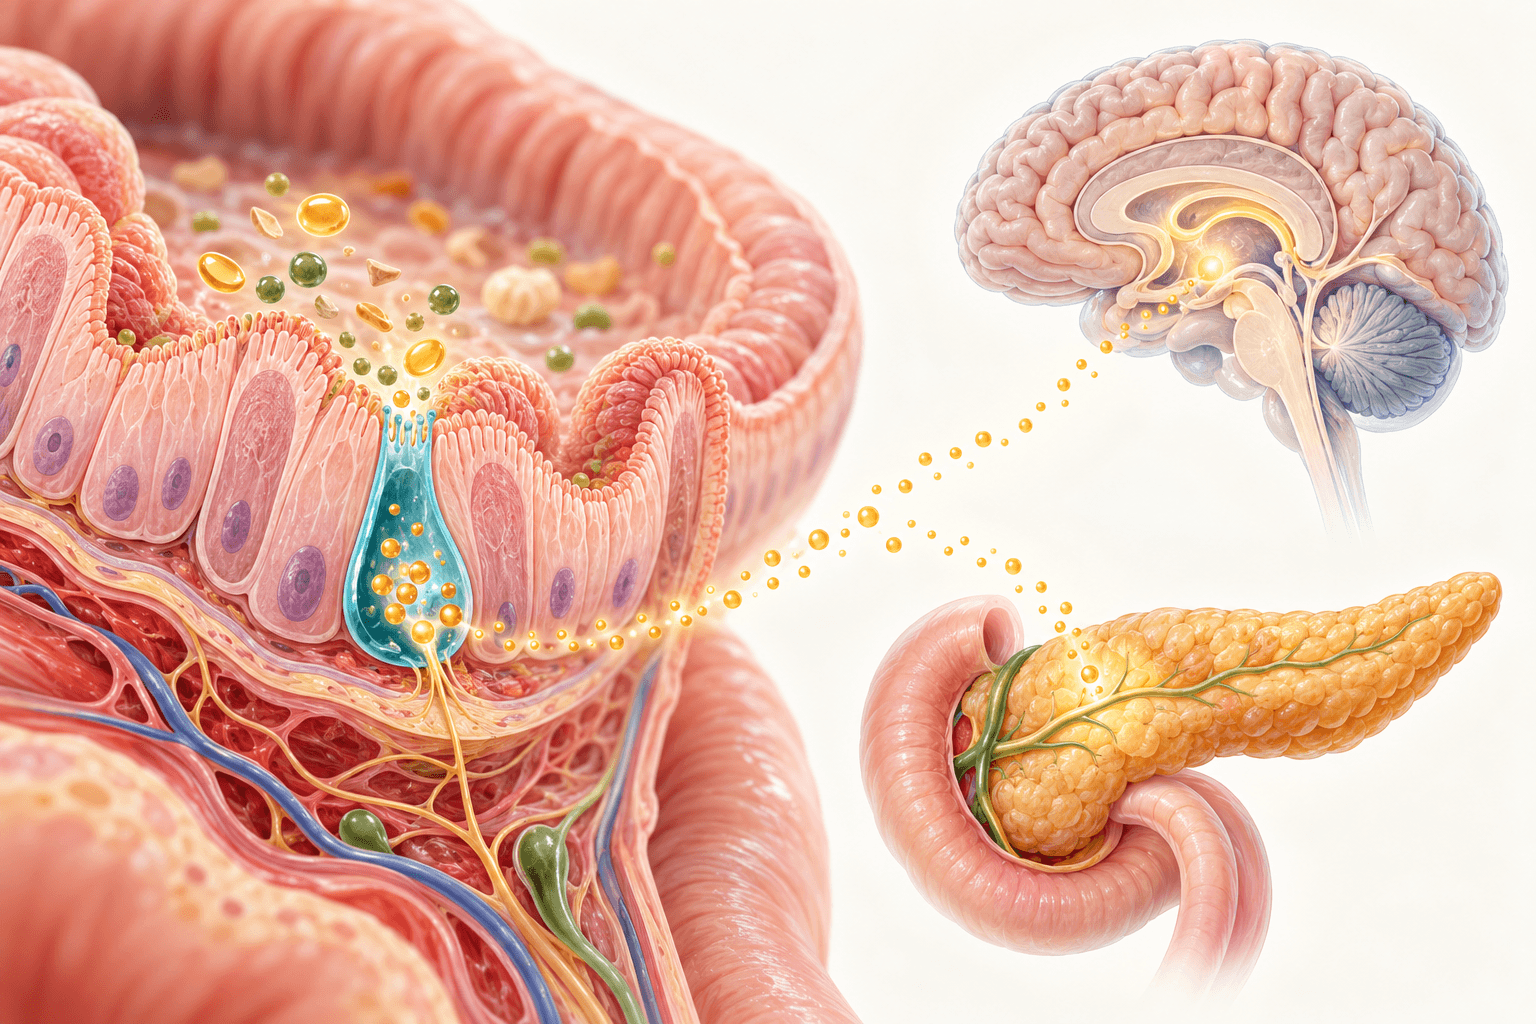
GLP-1: розпізнавання нутрієнтів, DPP-4 і система кишківник–мозок
Процесинг проглюкагону, GLP-1R, глюкозозалежна секреція інсуліну, DPP-4 та сенсори L-клітин. Мозкові мережі, випробування й межі харчових стратегій.
Процесинг проглюкагону, GLP-1R, глюкозозалежна секреція інсуліну, DPP-4 та сенсори L-клітин. Мозкові мережі, випробування й межі харчових стратегій.
Глюкагоноподібний пептид-1 пов’язує надходження їжі до кишківника із секрецією інсуліну, моторикою шлунка та споживанням енергії. Він допомагає пояснити сильнішу інсулінову відповідь на пероральну глюкозу порівняно з внутрішньовенною за однакової глікемії. Звідси інтерес до продуктів, які стимулюють ентероендокринні L-клітини. Проте короткий підйом власного гормону після їжі не відтворює тривалої експозиції рецепторних агоністів і сам собою не доводить відповідного зниження ваги чи захисту від хвороб.
Ген GCG людини в ділянці 2q24.2 кодує препроглюкагон. Після видалення сигнального пептиду залишається проглюкагон, зазвичай описуваний як 160-амінокислотний ланцюг: це не довжина всього первинного продукту трансляції. Модульна організація екзонів об’єднує послідовності споріднених пептидів. Точні межі екзонів, довжина транскрипту та координати розщеплення потребують названого транскрипту й системи нумерації; універсальна карта із шести однакових блоків надмірно спрощує ген.
У звичайному шляху панкреатичних α-клітин переважає прогормонконвертаза PC2, кодована PCSK2. Утворюються глюкагон і глюкагонспоріднений панкреатичний поліпептид, тоді як GLP-послідовності залишаються у великому C-кінцевому фрагменті MPGF. У кишкових L-клітинах і проглюкагонових нейронах стовбура мозку PC1/3, продукт PCSK1, підтримує утворення GLP-1, GLP-2 та інших похідних. Гліцентин і оксинтомодулін містять глюкагонову послідовність усередині довших пептидів. Оксинтомодулін біологічно активний, а не просто «заблокований глюкагон». Пошкодження чи метаболічний стрес можуть змінювати процесинг α-клітин; спеціалізація тканин — переважний патерн, а не незмінна заборона.
Активні природні форми GLP-1(7–36)амід і GLP-1(7–37) містять відповідно 30 і 31 амінокислоту. Нумерація належить сегменту GLP-1, а не всьому попереднику. N-кінцевий гістидин важливий для активації рецептора. GLP-1(1–37) значно слабший щодо звичайної інкретинової активності; зведення його дозрівання до одного невизначеного обов’язкового ферментного кроку приховує специфічність процесингу.
Пептидилгліцин-α-амідуюча монооксигеназа PAM перетворює гліцин-подовжений пептид на амідований. Гідроксилювальна й ліазна активності залучають кисень, мідь і відновні еквіваленти аскорбату; вивільняється гліоксилат. Нижче подано схему дозрівання, а не повністю збалансоване хімічне рівняння:
У багатьох вимірюваннях людини амідована форма становить приблизно чотири п’ятих активного пулу, але частка залежить від аналізу та відбору проб. Обидві активні форми стимулюють GLP-1R; переважання не доводить клінічної переваги однієї. Фізіологію процесингу описують Drucker (2006), Holst (2007), Baggio і Drucker (2007).
GLP-1R — G-білок-спряжений рецептор класу B1 із позаклітинним N-кінцевим доменом, сімома трансмембранними спіралями, петлями та цитоплазматичною C-кінцевою ділянкою. У дводоменній моделі C-кінець пептиду взаємодіє з позаклітинним доменом, N-кінець — із трансмембранним ядром. Активна конформація включає зміщення внутрішньоклітинної частини TM6 назовні для розміщення Gs. Це структурне розпізнавання, а не каталіз у «активному центрі» пептиду.
Ідентифікатори структур потрібно розрізняти. PDB 5VAI із роботи Zhang 2017 року містить рецептор кролика й компоненти різних видів. PDB 6B3J — людський GLP-1R–Gs із пептидним агоністом зі зміщеною сигналізацією; PDB 6ORV містить непептидний TT-OAD2. Вони не є трьома рівнозначними знімками нативного людського GLP-1. Контакти залишків, відстані й «іонні замки» прив’язані до конкретного конструкта та порівняння. Загальна робота Liang 2017 року про інший рецептор класу B не замінює структуру GLP-1R.
Активація сприяє обміну GDP на GTP у Gαs та активації аденілатциклази. ATP є джерелом циклічного AMP:
cAMP активує PKA та фактор обміну Epac2, кодований RAPGEF4. PKA змінює роботу іонних каналів, екзоцитозних білків і транскрипційних відповідей, зокрема фосфорилювання CREB. Epac2 активує Rap1 і разом із RIM2, Piccolo, Rab3 та Munc13 бере участь у залученні й підготовці гранул. PLCε та вивільнення внутрішньоклітинного кальцію залучаються за певних експериментальних умов. Зростає секреторна готовність, а потреба в кальції не зникає.
GRK і β-арестини регулюють десенситизацію, інтерналізацію та транспорт рецептора. Арестини можуть організовувати додаткові сигнали, включно з ERK, але інтерналізація не обов’язково припиняє всю Gs-сигналізацію: важливі ендосоми та властивості ліганду. Універсальний лінійний ланцюг «арестин зв’язався — весь cAMP зник — незалежно почався Akt» не відповідає складності процесу.
McIntyre та Elrick із колегами незалежно продемонстрували відмінність пероральної та внутрішньовенної інсулінової відповіді 1964 року. У сучасному ізоглікемічному порівнянні внутрішньовенну швидкість підбирають для відтворення перорального профілю глюкози; одна фіксована інфузія не гарантує однакової глікемії. Для зіставних площ під кривою інсуліну або C-пептиду:
AUC — площа за визначений час; потрібні однакові аналіт і спосіб урахування початкового рівня. У знаменнику пероральна AUC, тому дворазова відповідь відповідає 50%, а не 200%. Близько 50–70% спостерігають у придатних умовах здорових досліджень, але результат залежить від навантаження й протоколу. GLP-1 та глюкозозалежний інсулінотропний поліпептид GIP беруть участь разом. K-клітини переважно проксимальні; L-клітини є по всьому кишківнику з дистальним збагаченням. При діабеті 2-го типу ефект часто зменшується через порушення відповіді β-клітин, особливо на GIP, та інші зміни; не всі випадки пояснює дефіцит GLP-1 чи єдиний поріг нижче 20%.
Захоплення й глюкокіназний метаболізм глюкози підвищують ATP/ADP. Важливі людські транспортери GLUT1/GLUT3 відрізняються від поширеної GLUT2-моделі гризунів. Глюкокіназа — EC 2.7.1.2, а не звичайна гексокіназа EC 2.7.1.1. ATP-чутливі калієві канали Kir6.2/SUR1 закриваються, калієва провідність зменшується, мембрана деполяризується й відкриваються потенціалзалежні кальцієві канали. Типи каналів і потенціали залежать від виду та препарату клітин.
GLP-1R–cAMP посилює цей підтримуваний глюкозою процес. PKA й Epac2 змінюють кальцієву чутливість і доступність гранул. Готовий до вивільнення та резервний пули допомагають пояснити ранню і тривалу фази. SNARE syntaxin, SNAP-25, VAMP2, сенсори на кшталт synaptotagmin і механізми підготовки беруть участь без обов’язковості кожного запропонованого контакту в усіх клітинах.
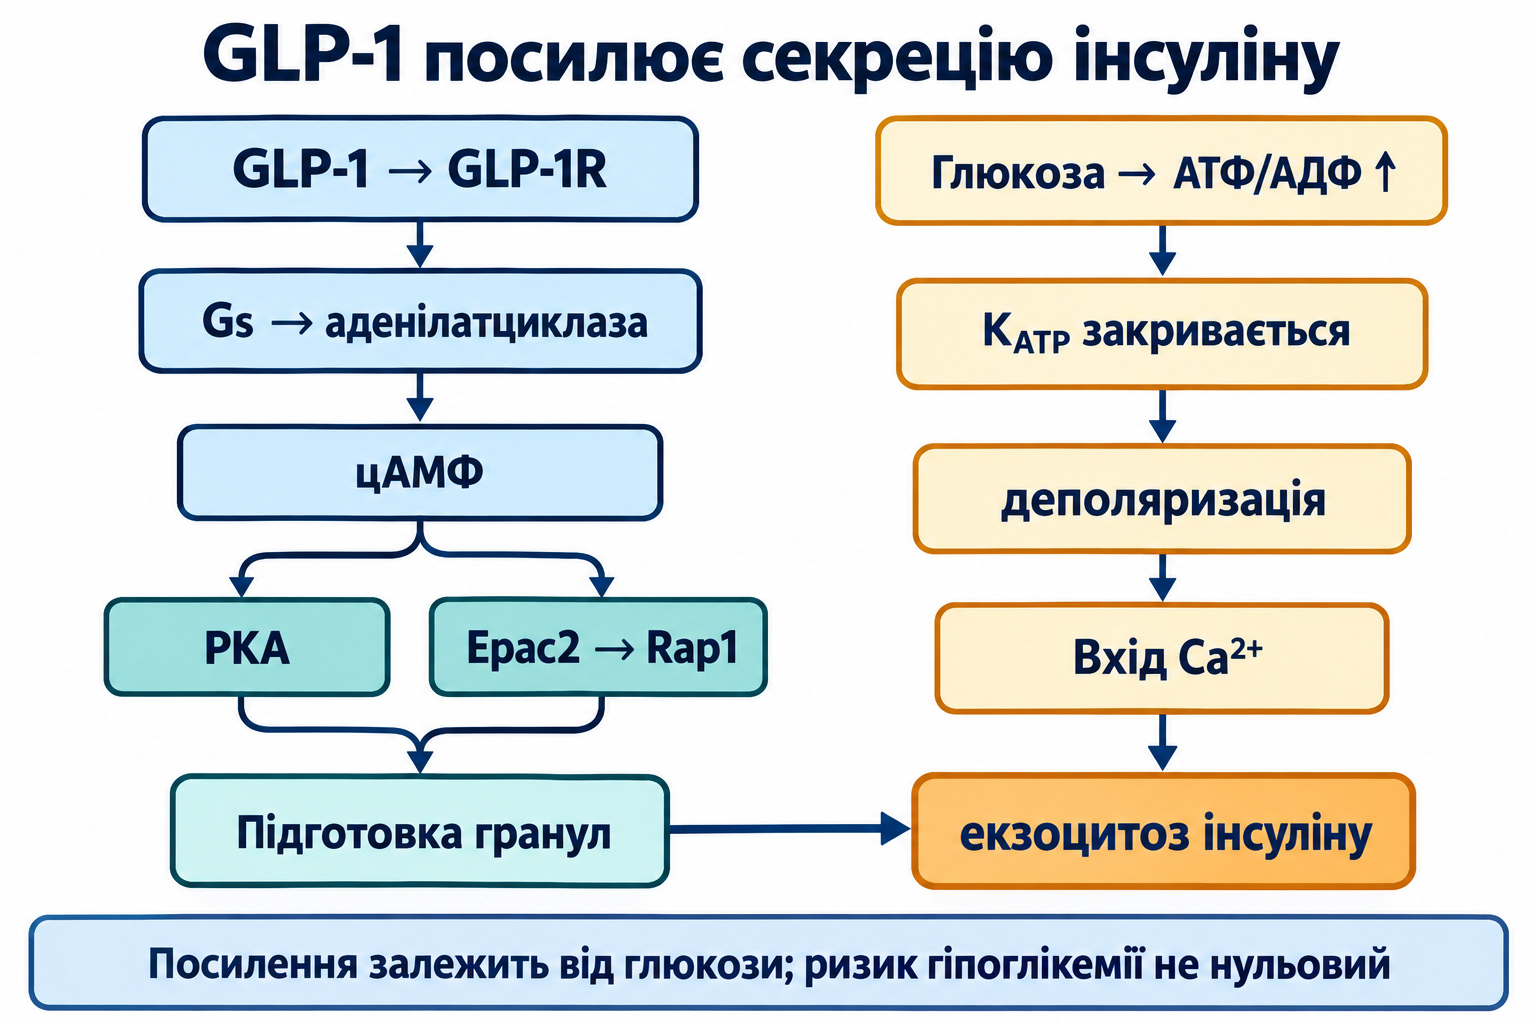
Глюкозозалежність підтримує низький власний ризик гіпоглікемії, але не нульовий ризик за будь-яких обставин. Відсутність секреції при еуглікемії — надто сильне твердження. Супутні інсулін і сульфонілсечовина змінюють ризик. Фіксовані пороги 4,5–5,0 або 3,8–4,0 ммоль/л не описують усіх пацієнтів та експериментів.
GLP-1 також пригнічує глюкагон за відповідної глікемії. Соматостатин δ-клітин діє на SSTR2 α-клітин і є важливим паракринним механізмом. Інсулін, місцева сигналізація та можливі прямі ефекти залежать від моделі. Gi-залежне гальмування не доводить миттєвої повної блокади всіх кальцієвих каналів. Збереження контррегуляції за низької глюкози — фізіологічна тенденція, а не універсальний числовий перемикач.
PKA/CREB, Akt, родина Bcl-2 та PDX1 пов’язують рецептор із синтезом інсуліну, виживанням і диференційованою функцією β-клітин. Активація CREB зазвичай включає фосфорилювання й кофактори; «дефосфорильований активний CREB» суперечить описаному шляху. Проліферація і можливий неогенез у гризунів не доводять регенерації β-клітинної маси дорослої людини їжею, добавками чи ліками.
DPP-4/CD26, EC 3.4.14.5, — серинова пептидаза мембранного типу II із розчинною формою. Глікозильовані мономери утворюють димер; позаклітинна частина має восьмилопатевий β-пропелер та α/β-гідролазний домен. Структура Rasmussen 1N1M містить інгібітор/аналог субстрату, її правильний PubMed ID — 12483204, а не 12483274. Каталітична тріада людини — Ser630–Asp708–His740. Сильна перевага передостаннього N-кінцевого проліну або аланіну не означає виключної специфічності.
Mentlein (1993) і Deacon (1995) встановили швидку N-кінцеву деградацію. DPP-4 гідролізує зв’язок після Ala8, вивільняючи His7–Ala8:
Атака серину спочатку створює тетраедричний проміжний продукт, потім ацил-фермент; водний гідроліз вивільняє продукт. Це окремі стадії, а не «тетраедричний ацил-фермент». Усічений пептид значно втрачає звичайну інкретинову активність. Антагонізм і рецептор-незалежні метаболічні/судинні дії досліджували при певних концентраціях і в окремих моделях. Універсальна тисячократна зміна спорідненості та фізіологічно важливий субнаномолярний антагонізм не випливають з оригіналу.
Інтактний GLP-1 має циркулюючий період напівжиття приблизно одну–дві хвилини. Кишкові капіляри, печінка й кров швидко обмежують системну експозицію. Часто згадувані 10–15% секретованого інтактного пептиду в системній крові — модельна оцінка, не стала частка кожного прийому їжі. При послідовній екстракції потрібно вказати, чи відсоток належить початковому або залишковому пулу: добуток залишкових часток не дорівнює відніманню двох втрат із початкового.
Для ідеалізованого розпаду першого порядку після припинення секреції:
C — концентрація інтактного пептиду, t — час, k має одиниці оберненого часу. Секреція й розподіл, що тривають, обмежують застосування рівняння до постпрандіальних проб. Константа Міхаеліса in vitro не визначає кліренс in vivo. Вимога сотень пмоль/кг/хв для нативної інфузії не обґрунтована: експерименти людини працювали зі значно нижчим порядком величини. Це не інфузійний протокол.
Неприлізин NEP/CD10, EC 3.4.24.11, розщеплює внутрішні пептидні зв’язки. Нирки видаляють пептид і метаболіти; хронічна хвороба нирок змінює експозицію. Точні місця розщеплення, обов’язковий megalin–cubilin і повне ниркове видалення кожного фрагмента потребують окремих доказів. «Загальний» та «активний» GLP-1 — різні аналітичні пули. Збір проб і запобігання деградації ex vivo важливі; одна концентрація не вимірює число L-клітин, рецепторну чутливість чи насичення.
L-клітини відкритого типу контактують із просвітом апікальним відростком, а гормон виділяють базолатерально. Вони є проксимально й дистально, іноді співекспресують PYY та інші гормони. Не всі рецептори обмежені апікальними мікроворсинками. Всмоктування, базолатеральний доступ, вид, сегмент і підготовка тканини змінюють спостережуваний розподіл.
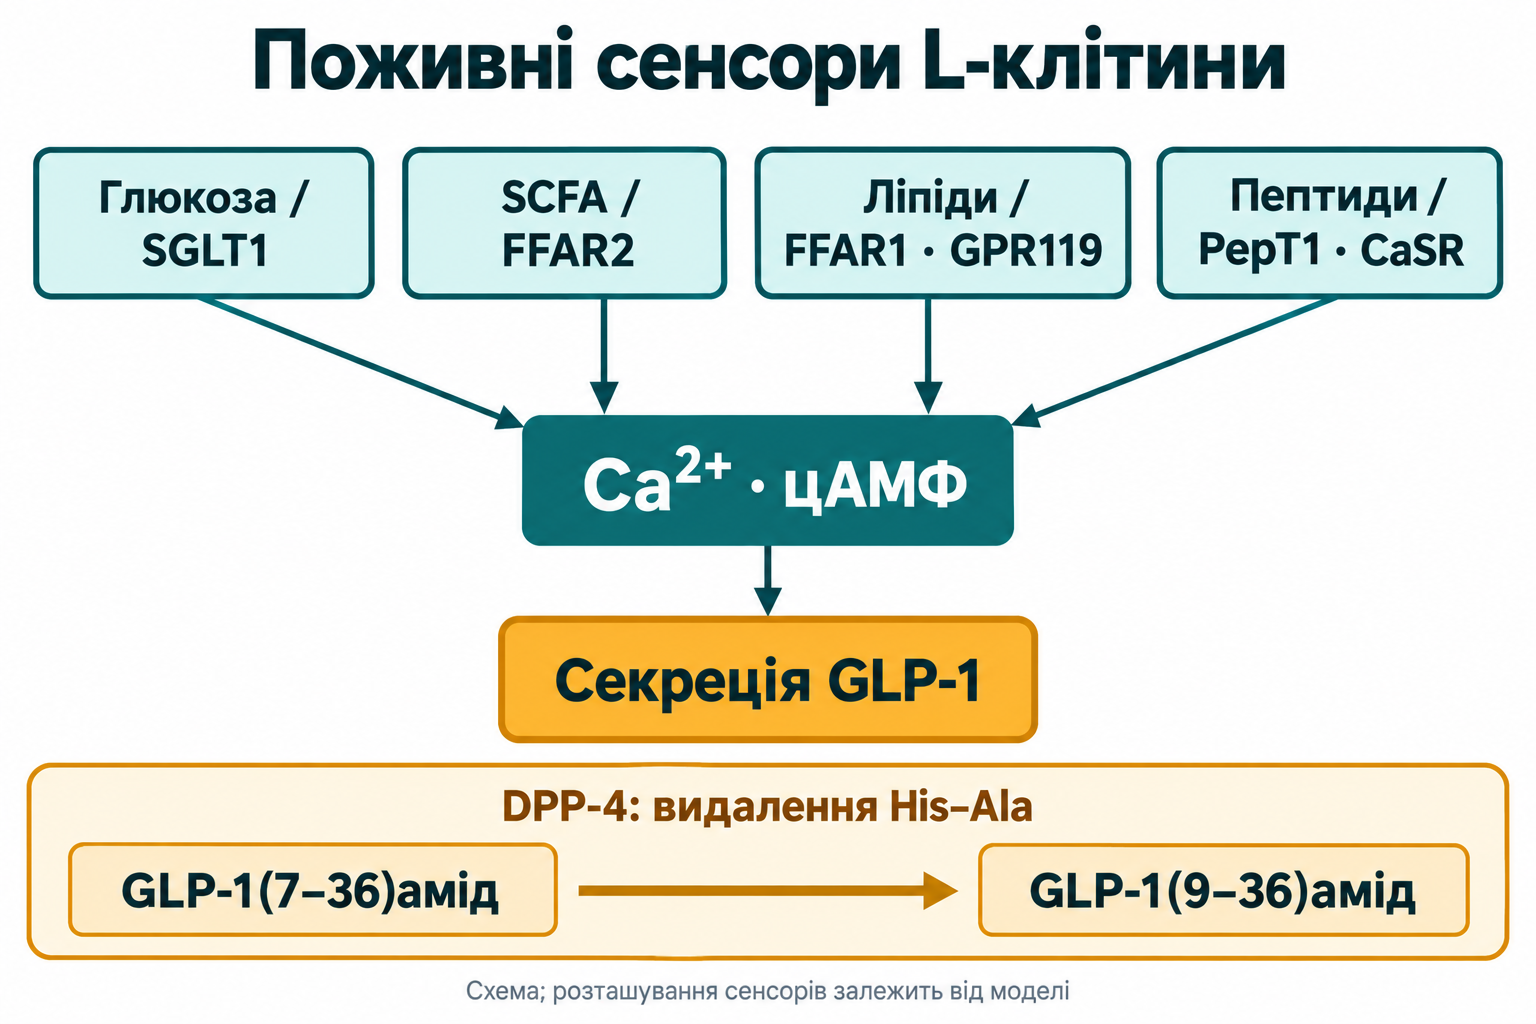
Ферментація погано перетравлюваних вуглеводів дає ацетат, пропіонат і бутират. Просвітні концентрації, пропорції й системна експозиція відрізняються. Tolhurst (2012) показав FFAR2-залежну секрецію в експериментальних системах. FFAR2/GPR43 спряжений із Gq/11 та Gi/o; Gq–PLC–IP3 може вивільняти внутрішньоклітинний кальцій. FFAR3/GPR41 переважно Gi/o, а не універсально стимулюючий cAMP-рецептор. Lin (2012) виявив ефекти, незалежні від FFAR3, що підтримує кілька механізмів.
Бутират може інгібувати гістондеацетилази й змінювати епітеліальний метаболізм та диференціювання. NEUROG3 і NEUROD1 належать ентероендокринним програмам розвитку. Це робить зміну секреторної ємності правдоподібною в моделях, але не доводить, що будь-яка доза клітковини підвищує саме H3K9ac/H3K27ac біля людського GCG чи викликає корисну L-клітинну гіперплазію. Гостра секреція та тривале диференціювання — різні кінцеві точки.
FFAR1/GPR40 і FFAR4/GPR120 розпізнають довголанцюгові жирні кислоти в відповідних препаратах. Hirasawa (2005) допоміг установити FFAR4-пов’язану секрецію. Gq/кальцієва сигналізація та β-арестинові протизапальні шляхи важливі експериментально, але FFAR4–TAB1–TAK1 в інших типах клітин не можна автоматично приписувати кожній людській L-клітині.
GPR119 розпізнає ліпідні ліганди, зокрема 2-моноацилгліцероли та олеоїлетаноламід OEA. Lauffer (2009) показав OEA-залежну секрецію в L-клітинних моделях. Gs–cAMP відрізняється від Gq–IP3. Посилення екзоцитозу не доводить незалежності від кальцію. Харчова олеїнова кислота, синтез ліганду й оливкова олія не є тотожними фармакологічними агоністами. OEA утворюється через ліпідні проміжні продукти й має PPARα-пов’язану біологію насичення; це не одностадійне перетворення тільки для GPR119.
SGLT1/SLC5A1 електрогенно переносить глюкозу й галактозу з натрієм. Звичайна стехіометрія — два натрієві іони на молекулу глюкози:
Градієнт натрію, опосередковано підтримуваний Na/K-ATPase, забезпечує вхід і деполяризацію. Вхід кальцію запускає секрецію. Gorboulev (2012) установив важливість для всмоктування й інкретинів. GLUT2 та TAS1R2/TAS1R3 залежать від моделі. Блокування проксимального транспорту може послабити ранню відповідь, але змінити дистальну доставку й пізню секрецію; воно не мусить усувати весь GLP-1.
PepT1/SLC15A1 переносить ди- й трипептиди з протонами та може електрогенно сигналізувати. CaSR, GPCR класу C, реагує на позаклітинний кальцій і амінокислотну модуляцію, особливо ароматичні амінокислоти за належних умов. Глутамін, аргінін і білкові гідролізати діють через транспорт, метаболізм та рецептори, а не обов’язково виключно через один карман CaSR.
Кишкова смакова сигналізація, зокрема Kokrashvili (2009), включає gustducin, PLCβ2, IP3 і TRPM5. TRPM5 проводить одновалентні катіони й сприяє деполяризації після кальцієвого сигналу; він не є каналом входу кальцію. Горькі TAS2R і солодкі TAS1R залежать від рецептора, речовини й моделі. Гіркий продукт або поліфенол тому не стає доведеним ефективним GLP-1-лікуванням людини.
Сенсорні вагальні нейрони, вузловий ганглій, ядро одиночного шляху NTS та інші стовбурові мережі інтегрують механічні, кишкові й метаболічні сигнали. GLP-1R-позитивні популяції мають різні функції, включно з механорецепцією; не всі є однаковими закінченнями безпосередньо після L-клітини.
Стовбурові проглюкагонові нейрони синтезують GLP-1 локально та проєктуються до гіпоталамуса й інших ділянок. Trapp і Cork (2015) описують центральну систему. Brierley (2021) експериментально показав незалежні шляхи пригнічення харчування центральною та периферичною системами. Отже, обов’язкова схема L-клітина→вагус→PPG→гіпоталамус надто жорстка.
Area postrema й median eminence дають спеціалізований доступ. Важливі препарат, тривалість експозиції, рецепторний розподіл і бар’єри: фенестровані капіляри не означають вільного проникнення природного пептиду в увесь мозок. OVLT не є універсально доведеними воротами GLP-1-анорексії без спеціальних доказів. Sisley і Secher (2014) установили нейрональні й аркуатні механізми ліраглутиду експериментально, а не однакові шляхи всіх фізіологічних імпульсів.
POMC/CART, α-MSH–MC4R та NPY/AgRP інтегрують енергетичні сигнали через прямі й непрямі дії, гальмівні інтернейрони й проєкції поза аркуатним ядром. Спільні компоненти з лептиновою сигналізацією та резистентністю не роблять гормони рівнозначними. Alhadeff (2012) показав проєкції до VTA й nucleus accumbens, які беруть участь у споживанні їжі. Модуляція винагороди не усуває весь дофамін, гедонічний апетит чи «харчовий шум». Побутовий термін не визначає конкретний синапс і універсальну відповідь на ліки.
GLP-1 може сповільнювати спорожнення шлунка через вагальні й ентеральні зв’язки, акомодацію та пілоричну координацію. Розтягнення додає механосенсорну інформацію. IGLE — intraganglionic laminar endings, IMA — intramuscular arrays; «Intraneural Galvanic Mechanoreceptors» не є коректною анатомічною категорією. Ефект залежить від початкового спорожнення, препарату й експозиції та може слабшати при тривалій стимуляції. Сповільнення, менше споживання й нудота — пов’язані, але різні явища.
PKA/AMPK/eNOS/NO формують експериментальні судинні гіпотези, mPTP-моделі досліджують ішемію. Не можна припускати рецептор у кожній ендотеліальній, гладком’язовій чи серцевій клітині за невалідованими антитілами. Серцево-судинну користь окремих ліків установлюють дослідження клінічних наслідків; вона не випливає з одного фосфорилювання й не переноситься на нутрієнти.
Crajoinas досліджував PKA-залежну регуляцію NHE3/SLC9A3 та нирковий транспорт натрію. Канальцеві дані не встановлюють точну людську локалізацію GLP-1R; важливі судинні й непрямі механізми. Натрійурез, артеріальний тиск і довгострокові ниркові наслідки — різні рівні доказів. Видоспецифічні фосфосайти та апікальна локалізація потребують окремої перевірки.
NF-κB і NLRP3 пов’язані з експериментальними запальними ефектами, але не доводять функціонального GLP-1R у кожному макрофазі. NLRP3–caspase-1 безпосередньо обробляє IL-1β та IL-18; IL-6 і TNF не є всіма продуктами розщеплення цього комплексу. Вага, глікемія й тканинний стрес можуть діяти опосередковано.
Печінкові зміни також включають інсулін/глюкагон, потік жирних кислот із жирової тканини та харчування. Експресія рецептора в гепатоцитах залишається методологічним питанням. SREBP-1c й AMPK не доводять виліковування MASH природним гормоном або добавками. Newsome (2021), фаза 2, установив більше випадків розрішення стеатогепатиту при семаглутиді, але не значущу міжгрупову зміну стадії фіброзу. Гістологія, жир, трансамінази й клінічні наслідки — різні кінцеві точки.
Ліраглутид і семаглутид — агоністи GLP-1R. Семаглутид має стійку до DPP-4 амінокислотну заміну та C18-жирнокислотний діацильний компонент для зв’язування альбуміну; ліраглутид — C16-ацильний ланцюг. Приблизно тижневий період напівжиття належить семаглутиду, а не всім агоністам. Тирзепатид діє на GIP і GLP-1R, ретатрутид — на GIP, GLP-1R і глюкагоновий рецептор; це не «три мозкові рецептори ситості».
| Опубліковане дослідження | Учасники й експозиція | Результат ваги | Межі тлумачення |
|---|---|---|---|
| STEP 1, Wilding 2021 | 1961 дорослий; семаглутид 2,4 мг щотижня; 68 тижнів | Середнє −14,9%, плацебо −2,4% | Середній результат із втручанням у спосіб життя, не гарантія кожному |
| SURMOUNT-1, Jastreboff 2022 | 2539 дорослих без діабету; 72 тижні | При 15 мг тирзепатиду щотижня −20,9%, плацебо −3,1% | 22,5% належить іншій оцінюваній величині; SURPASS — інша програма діабету |
| Ретатрутид, фаза 2, Jastreboff 2023 | 338 дорослих; 48 тижнів | При 12 мг щотижня −24,2%, плацебо −2,1% | Історична фаза 2 не доводить харчової еквівалентності чи актуального регуляторного статусу |
Це опубліковані режими для пояснення результатів, не індивідуальні призначення. Міждослідні відсотки не є рандомізованим порівнянням. Актуальні показання й призначення потребують чинної інформації про продукт.
Інгібітори DPP-4, зокрема ситагліптин і вілдагліптин, зберігають власні активні інкретини, включно з GIP. Вони не обов’язково ковалентно блокують усі три каталітичні залишки. Зазвичай нейтральні щодо ваги й мають низький власний гіпоглікемічний ризик, який змінюється в комбінаціях. Експозиція й наслідки відрізняються від тривалого агонизму; серцево-судинні результати та серцева недостатність також залежать від засобу.
Інулін, резистентний крохмаль, частково гідролізована гуарова камедь і деякі β-глюкани відрізняються ферментованістю, в’язкістю, переносимістю й мікробіотними відповідями. Cani (2009) про GLP-2 і кишкову проникність у мишей підтримує зв’язок мікробіоти з метаболічним запаленням, а не гарантовану людську L-клітинну експансію. Клітковина має різні харчові цілі, але універсальні 15–25 г добавки для максимізації GLP-1 не валідовані. Перехресне живлення бактерій також заважає приписувати однакове утворення бутирату Bifidobacterium, Faecalibacterium та Akkermansia.
Клубовий гальмівний механізм поєднує нутрієнти, гормони й моторику, як описує Maljaars (2008). Інгібітори амілази Phaseolus vulgaris та 1-дезоксиноджириміцин DNJ із Morus alba можуть змінювати травлення у відповідних продуктах. SGLT1 переносить моносахариди, не неперетравлені олігосахариди. Затримка травлення змінює дистальну доставку глюкози або ферментацію, але не доводить потужної SGLT1–GLP-1-хвилі від кожного екстракту. Потрібні стандартизація, ферментна активність і людські клінічні точки.
Lu (2009) досліджував берберин у щурів зі стрептозотоциновим діабетом: це механістична підстава, а не доказ універсальної людської послідовності AMPK–GCG–мікробіота. Експозицію та взаємодії розглянуто в огляді берберину й дигідроберберину. Режим «500 мг двічі на день у стеку» не випливає з доклінічного досліду.
Оливкова олія містить олеїнову кислоту та інші складники і може бути частиною раціону. Ліпідна секреція й OEA не доводять терапевтичної рецепторної дози 15–20 мл. Додаткову енергію слід враховувати при оцінюванні ваги.
Білкові переднавантаження, зокрема сироватковий білок, у невеликих контрольованих людських дослідженнях змінювали інкретини, інсулін, спорожнення й глікемію. Кількість, час, вихідний діабет, склад їжі й додаткова енергія різнилися. 15–20 г за 15–30 хвилин — родина можливих досліджуваних стратегій, не універсальне призначення чи повне усунення екскурсії глюкози. Амінокислоти прямо впливають на інсулін і глюкагон; весь глікемічний ефект не можна автоматично приписати GLP-1.
Jakubowicz (2014) дослідив 15 учасників у гострому перехресному випробуванні з 50 г сироваткового білка. Воно не валідовує будь-яку меншу дозу.
| Втручання | Можливий шлях | Що потребує встановлення |
|---|---|---|
| Ферментована клітковина | SCFA, метаболізм епітелію, FFAR | Людські гормональні/клінічні наслідки конкретного продукту, переносимість |
| Квасоля/шовковиця | Травлення й дистальна доставка | Стандартизована активність і клінічні результати |
| Берберин | Доклінічна секреція, мікробіота, метаболізм | Людський механізм, взаємодії й користь |
| Оливкова олія | Ліпідні сенсори й ліганди | Заміна продуктів чи додавання енергії; немає універсальної дози GLP-1 |
| Білкове переднавантаження | Пептиди/амінокислоти, інсулін, моторика | Кількість, час і тривала клінічна користь |
BMAL1, CLOCK і PER пов’язують ентероендокринні функції із циркадною біологією в моделях. Ранково-вечірні відповіді людини також залежать від сну, порядку й складу їжі та толерантності до глюкози. Універсальний ранковий максимум GCG/SGLT1 або однаковий час прийому не випливають.
Grant (2006) пов’язав TCF7L2, включно з rs7903146, із ризиком діабету 2-го типу. Це не встановлює більшої дози клітковини для TT чи детермінованого пригнічення кишкового проглюкагону. GLP1R rs10305492 та DPP4 можуть впливати на окремі ознаки; рецепторна варіація не є автоматично зміною DPP-4-деградації. Асоціація, функція й передбачення відповіді потребують різних доказів.
Спостереження відповідає визначеному питанню: симптоми, глюкоза/HbA1c, вага, повноцінність раціону, відповідні ниркові й печінкові ризики. Постпрандіальна варіабельність і CGM пояснюють межі сенсорних даних. CGM не вимірює GLP-1 і не доводить його посередництва, не є обов’язковим для кожного при додаванні клітковини або білка. Обов’язковий аналіз панкреатичних ферментів перед невизначеним «стеком» не встановлено. Симптоми панкреатиту, виражена непереносимість і сильна затримка спорожнення потребують клінічної оцінки; протипоказання належать конкретному втручанню. Виразковий коліт не є загальною забороною всіх перелічених продуктів і волокон.
Це наративний науковий огляд з адресною перевіркою спірних структурних ідентифікаторів, механізмів та результатів за доступними первинними записами й публікаціями 8 жовтня 2026 року. Він не є систематичним оглядом, незалежним GRADE, клінічною валідацією або зовнішнім рецензуванням. Харчова секреція, експериментальні шляхи й фармакологічні наслідки залишаються на відповідних рівнях доказів. Мета — належний харчовий або клінічний результат, а не максимум гормонального аналізу від невалідованої комбінації.
Ні. Експозиція й клінічні докази різні.
Він видаляє N-кінцевий дипептид і різко знижує звичайну інкретинову активність.
Ні. Центральне утворення й периферична сигналізація можуть діяти незалежно.
Ні. Власний ризик низький, але супутні ліки й клінічний контекст важливі.
Наведені асоціації не валідовують дозування за генотипом.