
Пирролохинолинхинон (PQQ): редокс-химия, CREB–PGC-1α и границы клинических данных
От бактериального хинонового кофактора и клеточного биогенеза митохондрий до моделей сердца и мозга, малых исследований на людях и токсикологических ограничений.
От бактериального хинонового кофактора и клеточного биогенеза митохондрий до моделей сердца и мозга, малых исследований на людях и токсикологических ограничений.
Пирролохинолинхинон (PQQ, метоксатин) занимает необычное место между энзимологией бактерий и экспериментальной биологией млекопитающих. Для ряда бактериальных дегидрогеназ он действительно служит редокс-кофактором; в культурах клеток и у животных воздействие PQQ меняет показатели митохондриальной функции. Однако из этих наблюдений не следует, что PQQ — установленный витамин человека, универсальный внутримитохондриальный антиоксидант или доказанное средство лечения ишемии, нейродегенерации и метаболических заболеваний. Именно различие между химической возможностью, измеренным клеточным ответом и клиническим исходом определяет чтение всей последующей литературы.
История PQQ началась с бактериальных дегидрогеназ, активность которых не объяснялась привычными NAD(P)- и флавинзависимыми схемами. Исследования хинопротеинов метилотрофов привели к выделению нового низкомолекулярного кофактора; структурная работа Salisbury и соавторов закрепила за ним название «метоксатин». В метанолдегидрогеназе кофактор удерживается в белковом активном центре при участии иона металла и переносит восстановительные эквиваленты от субстрата к физиологическому акцептору. Такое ферментное окружение принципиально отличается от свободного PQQ, добавленного в среду культуры или принятого внутрь: концентрация, редокс-партнёры и конкурирующие реакции в этих ситуациях различны.
Сообщение Kasahara и Kato о предполагаемой роли PQQ как кофактора фермента катаболизма лизина у млекопитающих вызвало дискуссию о «новом витамине». Последующий критический разбор Felton и Anthony оспорил идентификацию такого кофактора. Диетические опыты на грызунах, в которых менялись содержание мтДНК и некоторые метаболические показатели, показывают биологическую чувствительность модели к составу рациона, но сами по себе не устанавливают обязательную PQQ-зависимую реакцию, синдром дефицита или норму потребности человека. «Витамин B14» остаётся неофициальным названием, а гипотеза «витамина долголетия» — рамкой для исследования долговременных эффектов питания, не признанием эссенциальности PQQ.
Бактерии синтезируют PQQ, а растения и пищевые продукты могут содержать его в малых количествах. Отсутствие у млекопитающих известного пути бактериального биосинтеза совместимо с пищевым поступлением, но не доказывает, что микробный PQQ является эволюционно закреплённым сигналом ядерно-митохондриального диалога. Это привлекательная гипотеза, для которой потребовались бы данные о доступности конкретного вещества в тканях, рецепции и зависимости физиологического ответа от концентрации in vivo.
Молекула PQQ имеет формулу и молярную массу около для свободной кислоты. Конденсированная ароматическая система несёт орто-хиноновый фрагмент и три карбоксильные группы. Положения C4 и C5 участвуют в двухэлектронном восстановлении хинона до гидрохиноновой формы; одноэлектронная ступень даёт семихиноновый интермедиат. Конкретное соотношение протонированных и депротонированных форм зависит от pH и среды, а динатриевая соль отличается по массе и растворимости от свободной кислоты. Поэтому структурную формулу, аналитическую концентрацию и массу добавки нельзя смешивать без указания химической формы.
Окисленная и восстановленная формы могут многократно переходить друг в друга, если присутствуют донор и акцептор электронов. Но число циклов — свойство строго заданного опыта с определёнными реагентами и временем наблюдения, а не неизменная «ёмкость» молекулы в ткани. Исходное сравнение «20 000 циклов PQQ против нескольких циклов витаминов C и E» не задаёт одинаковых условий и не подтверждается приведённой работой Paz как универсальная биологическая константа. Аскорбат и токоферол также регенерируются сопряжёнными клеточными системами, поэтому ранжировать их по такой таблице научно некорректно.
Хиноновая химия не тождественна безусловному поглощению свободных радикалов. Перенос электрона между PQQ, аминокислотами, белками и кислородом может в разных условиях сопровождаться как восстановлением окислителя, так и образованием активных форм кислорода. Для реакции в клетке значимы концентрации реагентов, скорость конкурирующих ферментативных путей, локализация, доступность восстановителя и металл-катализируемые побочные процессы. Поэтому формулы прямого «перехвата» супероксида, гидроксильного радикала и пероксинитрита не следует трактовать как доказательство, что после перорального приёма PQQ достигает нужного митохондриального микродомена и там превосходит супероксиддисмутазу или пероксиредоксины.
Три карбоксильные группы увеличивают полярность молекулы и делают её кислотно-основное состояние важным для растворимости, связывания с белками и прохождения через мембрану. Даже если при близком к нейтральному pH преобладают ионизованные формы, конкретную долю каждого микросостояния нельзя вывести без измеренных в данной среде; исходные значения , и не следует автоматически считать константами в цитозоле. Хинонный потенциал также зависит от протонирования: уравнение Нернста связывает наблюдаемый потенциал с активностями окисленной, восстановленной форм и , а не фиксирует один универсальный для всех компартментов. Эта физическая химия особенно важна при трактовке возможной прооксидантной реакции: для свободного хинона, связанного кофактора и комплексного аддукта с аминокислотой доступность электронов различна.
В хинопротеиновой дегидрогеназе белок ориентирует субстрат, PQQ и металлический ион, а затем передаёт электроны дальше по предусмотренному физиологическому маршруту. Свободный PQQ такого каталитического каркаса не имеет. Поэтому выражение «псевдофермент» применимо лишь как аналогия к реакции в растворе и не является идентификацией нового человеческого фермента. Даже если константа элементарной реакции с радикалом высока, её вклад в потоки клетки определяется произведением в сравнении с конкурирующими реакциями SOD, каталазы, пероксиредоксинов и глутатионовой системы в том же объёме.
| Уровень наблюдения | Что можно заключить | Чего заключить нельзя |
|---|---|---|
| Бактериальный хинопротеин | Связанный PQQ участвует в каталитическом переносе электронов. | Свободный PQQ выполняет тот же цикл в митохондрии человека. |
| Реакция в растворе | Возможны хинонная, семихинонная и хинольная формы; скорость зависит от среды. | Константа из раствора описывает защиту ткани при приёме внутрь. |
| Культура клеток | Экспозиция может изменить ROS, дыхание и экспрессию генов. | Измеренное изменение означает доказанную профилактику болезни у людей. |
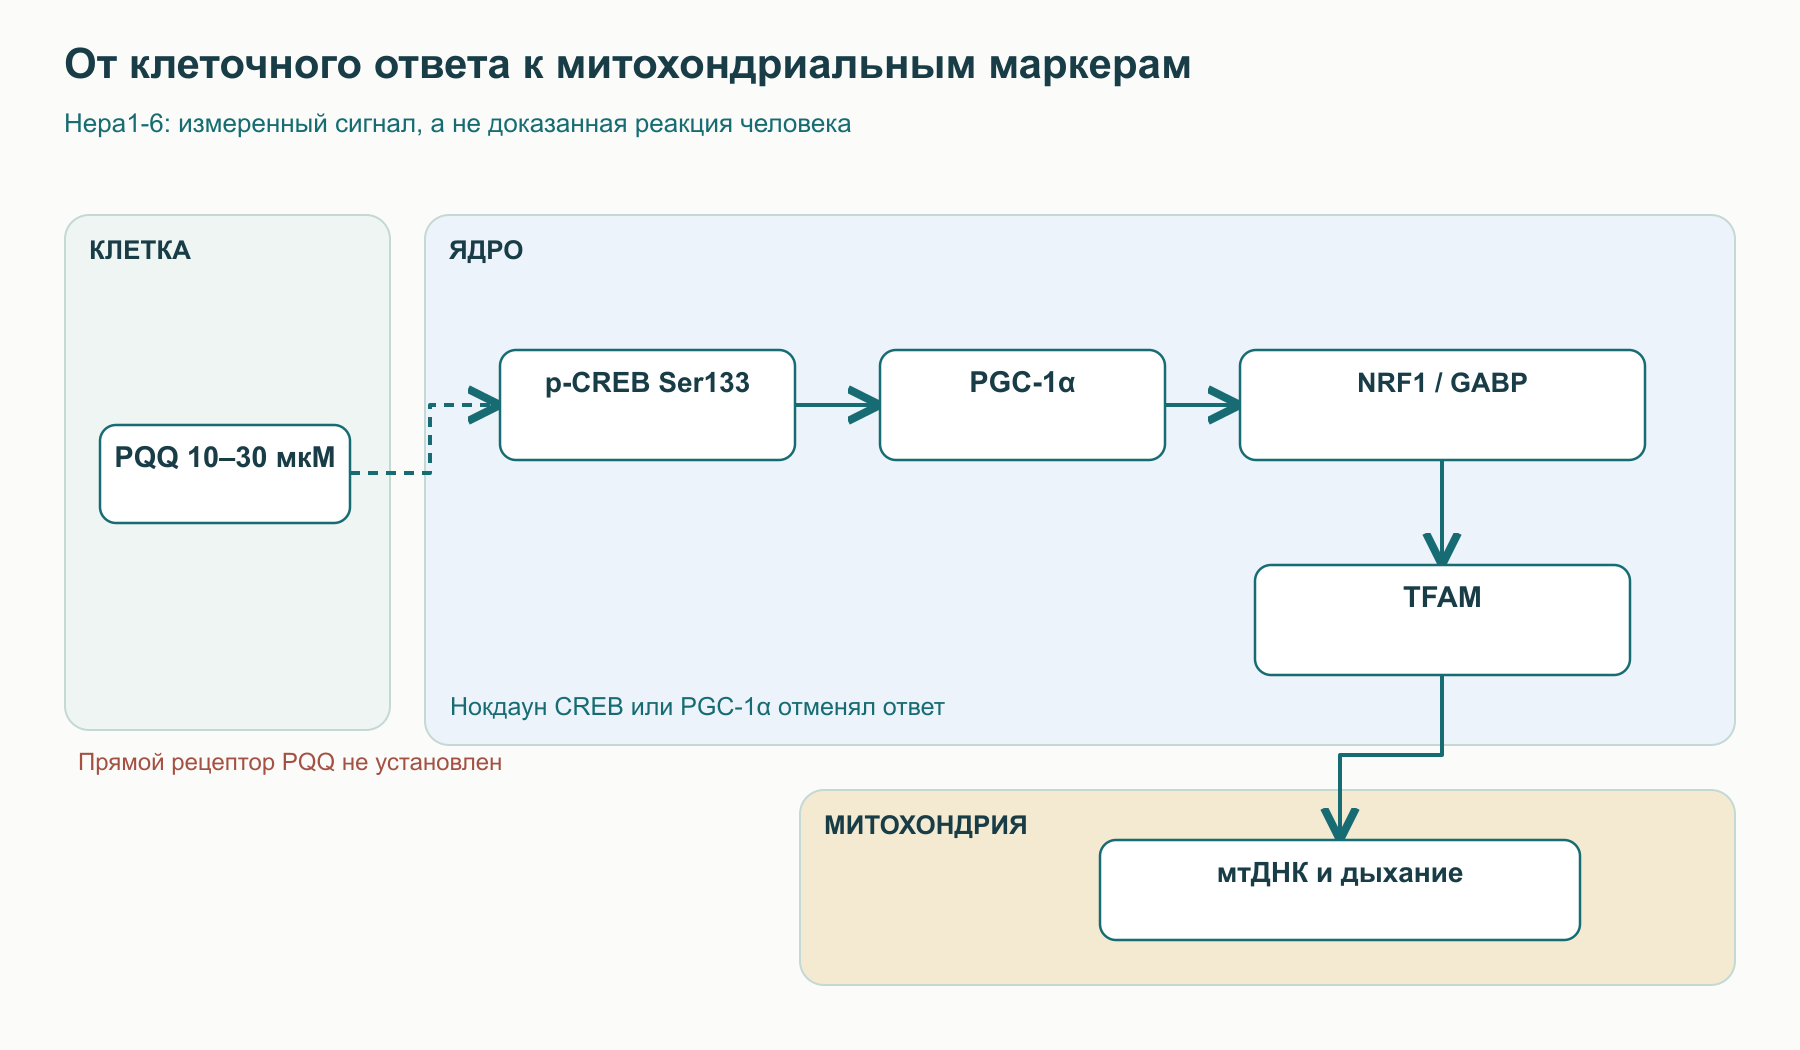
Ключевой опыт Chowanadisai и соавторов выполнен преимущественно на мышиных клетках печени Hepa1-6: при экспозиции PQQ – в течение – часов возросли активность цитратсинтазы и цитохром-c-оксидазы, окрашивание Mitotracker, отношение мтДНК к ядерной ДНК и потребление кислорода. Авторы обнаружили фосфорилирование CREB по Ser133, активацию промотора Ppargc1a и рост мРНК и белка PGC-1α. Нокдаун CREB или PGC-1α с помощью siRNA устранял индукцию митохондриальных маркеров, что существенно сильнее простой корреляции: в этой модели оба звена нужны для ответа на PQQ. При этом эксперимент не устанавливает, что у человека после обычной пероральной дозы достигается сопоставимая экспозиция гепатоцитов.
CREB — транскрипционный фактор, который после фосфорилирования Ser133 способен рекрутировать коактиваторы CBP/p300 к определённым промоторным контекстам. Каноническая схема цАМФ–PKA–CREB помогает понять возможный верхний участок сигнала, однако опыт с фосфорилированным CREB не доказывает сам по себе прямое связывание PQQ с аденилатциклазой, конкретной G-белковой субъединицей или обязательность каждой промежуточной стрелки. В модели нельзя смешивать наблюдение «CREB активирован» с установленным молекулярным рецептором PQQ. Формально PKA использует ATP для переноса фосфатной группы на белок, а PQQ в эту реакцию субстратом не входит:
Привязка ко времени также существенна: раннее изменение фосфорилирования транскрипционного фактора, более поздняя мРНК Ppargc1a, рост белка и спустя сутки признаки изменённого митохондриального содержания представляют разные уровни причинной цепи. Если измерены только конечные маркеры после 24–48 часов, нельзя реконструировать точную минутную кинетику цАМФ или активности аденилатциклазы. Для установления прямого пути понадобились бы селективные ингибиторы или генетическое выключение предполагаемой киназы, количественное измерение вторичного посредника и контроль неспецифического клеточного стресса. В исходном материале утверждение о всплеске цАМФ через 10–15 минут подано как установленное, хотя в цитируемом абстракте Chowanadisai подтверждены CREB Ser133 и зависимость от него, а не такая временная последовательность.
PGC-1α, продукт PPARGC1A, не связывает ДНК самостоятельно. Он коактивирует ядерные транскрипционные факторы, в том числе NRF1, GABP/NRF2, ERR и PPAR, причём набор партнёров зависит от ткани и метаболического состояния. Здесь важно различать GABP, исторически называемый «ядерным респираторным фактором 2», и NFE2L2/NRF2 — фактор антиоксидантного ответа: одинаковое сокращение «NRF2» обозначает разные белки. В клеточном опыте PQQ повышал активность NRF1 и GABP и экспрессию Tfam, Tfb1m и Tfb2m; это поддерживает связь между ядерной транскрипцией и митохондриальным ответом, но не означает измеренное увеличение каждой белковой субъединицы дыхательной цепи.
Предшественник TFAM образуется на цитозольных рибосомах, направляется через комплексы TOM и TIM во внутренние компартменты и после процессинга действует в матриксе. Он упаковывает мтДНК в нуклеоиды и участвует в инициации транскрипции вместе с митохондриальной РНК-полимеразой POLRMT и факторами TFB. Митохондриальный геном человека кодирует 13 полипептидов окислительного фосфорилирования — семь ND-субъединиц комплекса I, цитохром b комплекса III, три COX-субъединицы комплекса IV и ATP6/ATP8 комплекса V; комплекс II целиком кодируется ядерным геномом. Увеличение экспрессии Tfam и отношения мтДНК/яДНК не подтверждает автоматического прироста всех 13 продуктов, правильной сборки комплексов и более высокого выхода ATP на молекулу кислорода.
Последовательность импорта и сборки стоит различать по компартментам. Ядерно кодируемый TFAM пересекает внешнюю мембрану через комплекс TOM, внутреннюю — через механизм импорта, после чего его сигнальный пептид расщепляется в матриксе; только там он взаимодействует с мтДНК. Митохондриальные промоторы LSP и HSP обеспечивают транскрипцию полицистронных предшественников, которые затем процессируются и транслируются митохондриальными рибосомами. Для функционального комплекса требуются также десятки ядерно кодируемых субъединиц, их импорт, белки сборки, железо-серные центры, гемы и липидная среда. Поэтому наблюдение TFAM и мтДНК — важный, но неполный участок доказательства биогенеза.
Форма крист, содержание кардиолипина, MICOS, баланс слияния через MFN1/MFN2/OPA1 и деления через DRP1, а также PINK1/Parkin-зависимая митофагия могут определять качество митохондриальной сети. Но общая физиологическая связь этих структур не равна прямому доказательству, что именно PQQ меняет каждый из этих узлов в опыте Chowanadisai. «Биогенез» следует описывать через те измеренные признаки, которые действительно изучались — ферментативные активности, окрашивание, мтДНК и дыхание — с учётом того, что отдельный маркер не измеряет завершённую сборку функциональных органелл.
Электроны NADH и FADH₂ поступают в дыхательную цепь через комплексы I и II, далее через убихинон, комплекс III, цитохром c и комплекс IV к кислороду. Комплексы I, III и IV формируют протонный электрохимический градиент, который ATP-синтаза использует для фосфорилирования ADP. В некоторых условиях восстановленные промежуточные переносчики передают электрон кислороду с образованием супероксида; участки и скорость такого выхода зависят от субстратов, мембранного потенциала, кислородного режима и направления потока электронов. Универсальная доля «0,2–2% кислорода» не описывает все ткани и состояния. Высокий потенциал на фоне накопления сукцината при реперфузии может поддержать обратный перенос электронов к комплексу I и краткий всплеск ROS, но это конкретный механизм реперфузионной модели, а не обязательный эффект старения каждой клетки.
Протонодвижущая сила объединяет электрическую и химическую составляющие: при оговорённом направлении градиента и температуре. Число около на единицу pH получается только при определённой температуре, поэтому его нельзя подставлять как безусловную константу. Длительный дефицит кислорода, кальциевая перегрузка и окисление липидов могут нарушать сопряжение, снижать и заставлять ATP-синтазу работать в обратном направлении. Но больше митохондриальных маркеров не гарантирует лучший коэффициент сопряжения или меньшую продукцию ROS.
Переход митохондриальной проницаемости (mPTP) — кальций- и редокс-чувствительное увеличение проницаемости внутренней мембраны, ведущее к набуханию матрикса, утрате и при тяжёлом повреждении к разрыву внешней мембраны. Циклофилин D (PPIF) регулирует вероятность перехода; участие ANT и компонентов ATP-синтазы обсуждается, а каноническая схема «VDAC–ANT–CypD как единый доказанный канал» чрезмерно определённа. При выходе цитохрома c в цитозоль возможна сборка апоптосомы с APAF1, dATP/ATP и прокаспазой-9, тогда как при выраженном энергетическом коллапсе преобладает некротическое повреждение. Эти исходы зависят от дозы стресса и остаточного ATP.
В изолированных кардиомиоцитах Tao и соавторы показали, что предварительная экспозиция PQQ ослабляла ROS-сигнал и деполяризацию, вызванные ; в сравнительном опыте циклоспорин A тоже предотвращал потерю потенциала. Результат согласуется с влиянием на процессы, связанные с переходом проницаемости, но не доказывает прямого связывания PQQ с циклофилином D, удержания определённых тиолов ANT, нормализации NCLX или «блокады поры» у человека. Сообщённый в исходнике сдвиг порога кальциевого открытия в три-четыре раза не подтверждён указанным первичным опытом и исключён. Для структурного понимания значимы также кардиолипин и контакты внутренних мембран; их роль в патофизиологии не следует превращать в измеренный эффект PQQ без отдельного эксперимента.
SIRT1 преимущественно действует в ядре и цитозоле, SIRT3 — в митохондриальном матриксе. Их деацетилазные реакции зависят от и дают никотинамид и O-ацетил-ADP-рибозу; SIRT1 способен менять ацетилирование PGC-1α, а SIRT3 — некоторых митохондриальных ферментов, включая SOD2 и IDH2. В работе Huang на клетках HepG2 сообщалось об изменении экспрессии и активности SIRT1/SIRT3 после PQQ. Однако измерение сиртуинов в этой модели не подтверждает, что PQQ повышает доступность у людей, прямо деацетилирует каждый из перечисленных белков или усиливает всю дыхательную цепь через единый обязательный механизм. Для причинного вывода нужны независимые измерения ацетилирования конкретных субстратов, потоков и генетическое выключение соответствующего звена.
Различать количество NAD⁺, активность сиртуина и клинический эффект помогает отдельный разбор CD38 и NAD⁺ в контексте апигенина: сходство биохимического словаря не делает две добавки взаимозаменяемыми.
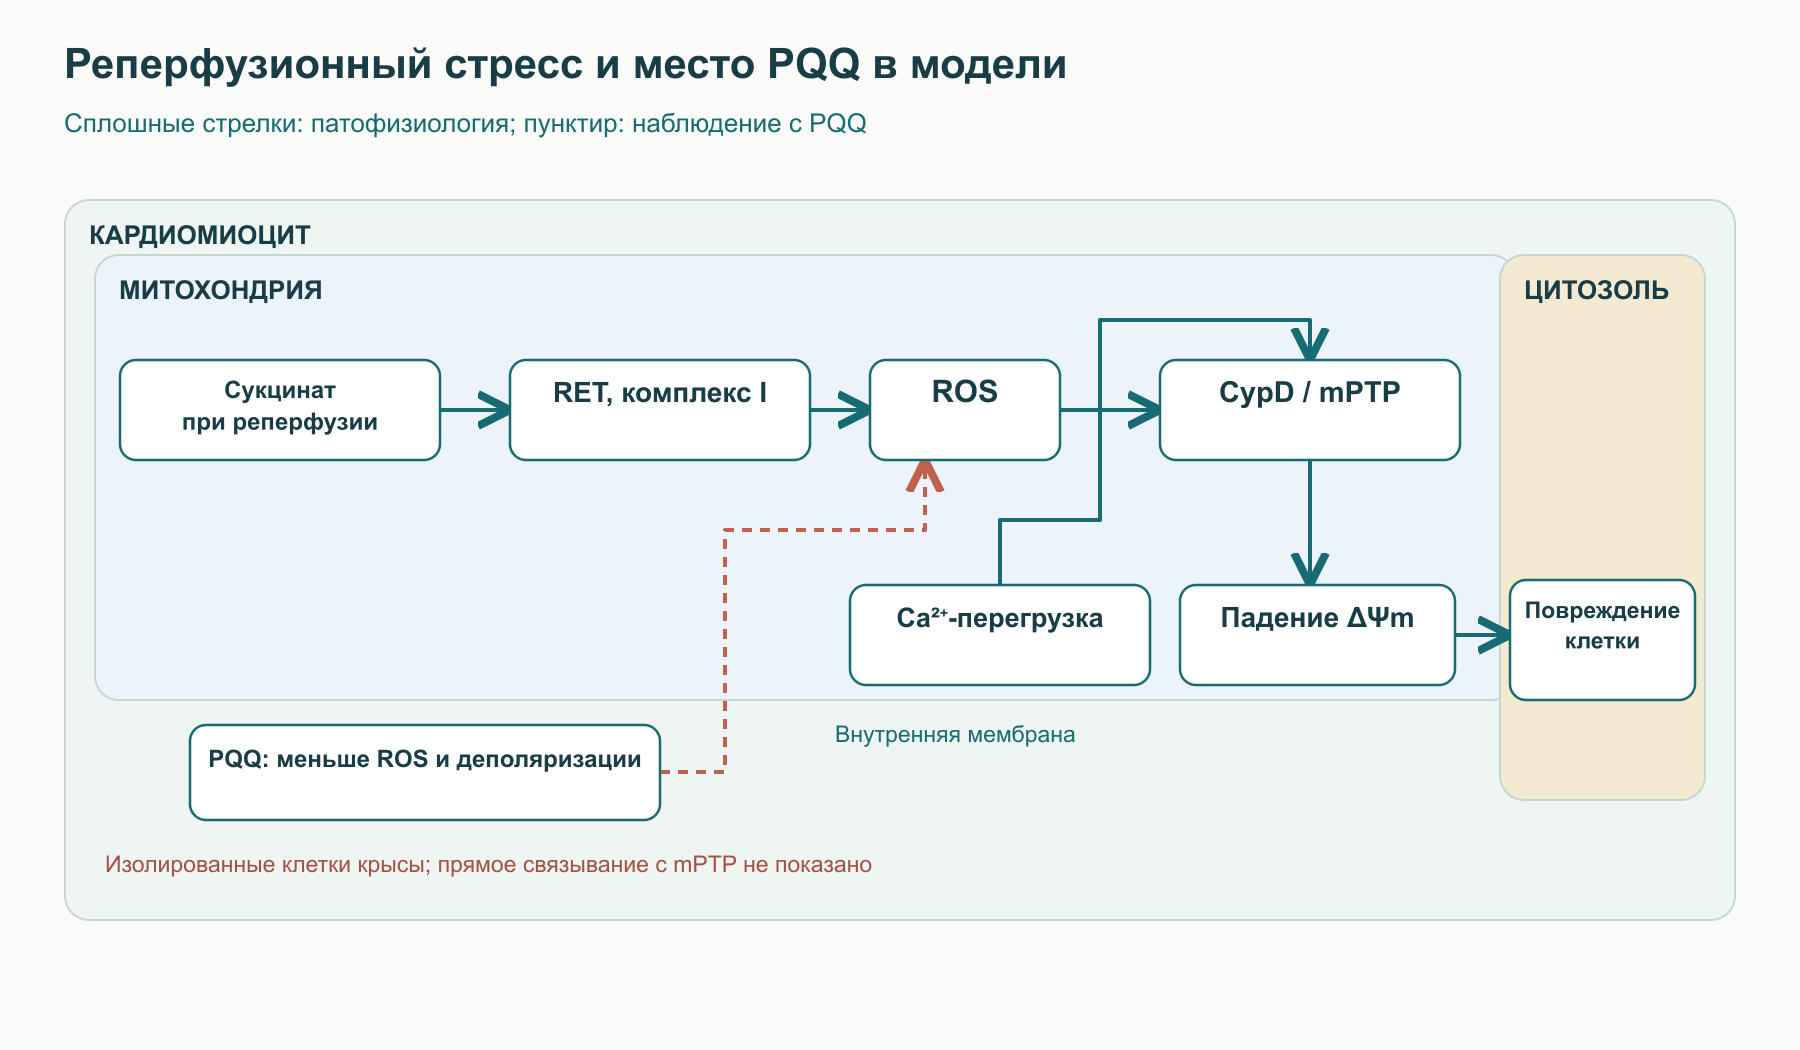
Во время коронарной ишемии падает окислительное фосфорилирование, накапливаются лактат и протоны, истощаются ATP и фосфокреатин. Нарушение работы Na⁺/K⁺-ATPазы, SERCA и ионных обменников способствует цитозольной и митохондриальной кальциевой перегрузке. Реперфузия возвращает кислород и нормализует pH, но при избытке сукцината и нарушенной цепи переноса электронов может вызвать резкий редокс-сдвиг; совместно с кальцием он облегчает переход проницаемости. Схема объясняет выбор мишеней в эксперименте, но не превращает любой антиоксидант в эффективное средство при инфаркте миокарда.
Zhu и соавторы исследовали крыс после перевязки передней нисходящей коронарной артерии: отдельная модель включала двухчасовую ишемию без реперфузии, другая — 17 или 30 минут окклюзии и два часа реперфузии. PQQ вводили внутрибрюшинно до окклюзии либо внутривенно в начале реперфузии, а не перорально в привычной пищевой дозе. При этих условиях авторы сообщили уменьшение площади инфаркта и улучшение ранних показателей давления; в модели реперфузии опубликованы отношения 18,4 ± 2,3% и 25,6 ± 3,5% в группах профилактического введения и введения при реперфузии против 38,1 ± 2,6% в контроле. Эти конкретные числа относятся к протоколу и способу нормирования авторов; исходные 55,4 → 26,1% не соответствуют его абстракту. Они не доказывают снижение смертности, улучшение долгосрочной фракции выброса или эквивалентность клинической реперфузионной терапии.
Изолированные кардиомиоциты взрослых крыс в опыте Tao получали и предварительно инкубировались с PQQ. Измеренные ROS, жизнеспособность и дали согласованный сигнал о клеточной защите; однако острый токсический стресс в чашке не воспроизводит сосудистую, иммунную и гемодинамическую составляющие инфаркта. Отдельное сравнение с метопрололом у крыс нельзя читать как доказанное клиническое превосходство: вмешательства имеют разные дозы, пути введения и механизмы. Утверждения исходника о многомесячном сохранении LVEF, постинфарктном ремоделировании и конкретных диапазонах LVEDP не подтверждены приведёнными краткосрочными опытами и здесь не воспроизводятся как факты.
Ранние работы Murase и Yamaguchi изучали продукцию фактора роста нервов (NGF) в астроглиальных или других экспериментальных системах после воздействия PQQ и производных. NGF действует через TrkA и p75NTR, тогда как BDNF преимущественно связан с TrkB; далее возможны PI3K–Akt и MAPK–ERK каскады выживания и пластичности. Но наличие клеточного NGF-ответа не равнозначно установленному росту NGF/BDNF в мозге человека, восстановлению базальных холинергических нейронов или лечению полинейропатии. Для BDNF отдельная модель и концентрационный контекст особенно важны: этот эффект нельзя автоматически переносить из NGF-исследований.
6-гидроксидофамин повреждает катехоламинергические клетки через окислительные реакции и хиноидные продукты, а ротенон ингибирует комплекс I и провоцирует энергетический и редокс-стресс. Работы Hara, Qin и Martin описывают нейропротективные сигналы PQQ в культурах и токсиновых моделях, включая показатели ROS, жизнеспособности и двигательного поведения животных. Токсиновые модели помогают разбирать механизмы болезни Паркинсона, но не воспроизводят всю хроническую человеческую патологию; исход в них нельзя переводить в обещание сохранения нейронов substantia nigra у пациентов. Прямое связывание с DJ-1, восстановление тирозингидроксилазы и конкретные поведенческие эффекты требуют привязки к отдельному опыту, а не объединения в одну универсальную цепь.
Для рекомбинантного α-синуклеина Kobayashi и соавторы наблюдали торможение образования фибрилл при добавлении PQQ; Kim и соавторы исследовали амилоидогенные белки, включая Aβ, in vitro. Тиофлавиновая флуоресценция, электронная микроскопия и структурные методы описывают агрегацию в пробирке, но снижение сигнала зрелых фибрилл не гарантирует отсутствия токсичных растворимых олигомеров и тем более клиренса микроглией. Поэтому заявления о ковалентной защите Lys16/Lys28 Aβ, полной деполимеризации уже существующих бляшек и лечебном эффекте при болезни Альцгеймера требуют иных данных. В клеточной модели Zhang сообщалось об ослаблении токсичности Aβ, однако она не устанавливает необходимую концентрацию свободного PQQ в мозге человека.
Aizenman и соавторы показали взаимодействие PQQ с редокс-модулируемым участком NMDA-рецепторного ответа. Цистеиновые остатки рецептора меняют чувствительность канала к окислительно-восстановительной среде; чрезмерный вход Ca²⁺ при глутаматной эксайтотоксичности активирует кальпаины, фосфолипазы и NO-синтазу. Это даёт правдоподобный экспериментальный контекст, но не подтверждает предложенную исходником точную стехиометрию прямого окисления пары конкретных цистеинов одной молекулой PQQ, безопасную избирательность относительно физиологической пластичности или эффективность при инсульте.
AMPK реагирует на клеточное энергетическое состояние и через фосфорилирование ACC уменьшает образование малонил-CoA; последний тормозит CPT1 и тем самым регулирует доступ длинноцепочечных ацилов к митохондриальному β-окислению. В мышце AMPK-зависимый сигнал может способствовать транслокации GLUT4 через регуляцию TBC1D4/AS160 и Rab-белков. PGC-1α, в свою очередь, коактивирует программы окислительного метаболизма через PPAR и другие факторы. Эта физиологическая сеть объясняет, какие конечные точки следует измерять в работах о PQQ, но сама по себе не показывает, что PQQ напрямую активирует AMPK по Thr172, восстанавливает чувствительность IRS1 у больных диабетом или повышает клиническую утилизацию глюкозы. Для таких выводов требуются тканевые потоки, обменные пробы и контролируемые исследования на людях.
Собственная энзимология входа жирных кислот разобрана в материале о карнитин-пальмитоилтрансферазе CPT1. Его механизм задаёт понятную границу для PQQ: транскрипционная гипотеза не заменяет измерение транспорта ацилов и скорости β-окисления.
Митохондриальный стресс может поддерживать воспаление через ROS, высвобождение мтДНК, NF-κB и NLRP3-инфламмасому. Активация NLRP3 приводит к созреванию каспазы-1 и процессингу IL-1β/IL-18; подавление IκBα–NF-κB-сигнала теоретически меняет экспрессию множества воспалительных генов. Однако объяснять изменение сывороточного CRP или IL-6 у здоровых участников прямым подавлением NLRP3 именно в их микроглии нельзя без соответствующих тканевых данных. Термин inflammaging описывает широкий возрастной феномен, а не установленное показание к PQQ.
Клинический массив по PQQ значительно уже набора доклинических моделей и разнороден по дизайну. Нельзя назвать все перечисленные в исходнике публикации рандомизированными двойными слепыми испытаниями: часть работ мала, часть имеет открытый дизайн, часть использует комбинацию веществ. Конечные точки в них — биомаркеры, результаты когнитивных тестов и самоотчёты, а не предупреждение инфаркта, прогрессирования деменции или смерти. При интерпретации нужно отдельно держать экспозицию PQQ, форму продукта, контрольную группу и исследуемую популяцию.
Harris и соавторы изучали небольшую группу здоровых добровольцев после однократного и краткого повторного приёма PQQ; исследование метаболомных и воспалительных маркеров носило исследовательский характер. Сообщались изменения некоторых показателей воспаления и метаболитов мочи, но отсутствие достаточной контролируемой клинической конечной точки не позволяет делать вывод о лечении хронического воспаления. Изменение экскреции органических кислот не равняется прямому измерению эффективности сопряжения митохондрий или синтеза ATP в мышце. У исходника этой работы неверный идентификатор: правильный PMID — 24231099, DOI 10.1016/j.jnutbio.2013.07.008. Поэтому приведённое им точное «снижение hs-CRP на 45% за 76 часов» без подтверждения протоколом и контрольным сравнением не используется как воспроизводимый клинический эффект.
В публикации Itoh и соавторов 41 здоровый пожилой участник был включён в рандомизированное двойное слепое плацебо-контролируемое исследование динатриевой соли PQQ. Изменения отдельных когнитивных показателей в такой выборке формируют гипотезу, но требуют внимания к множественности тестов, исходному уровню, размеру эффекта и воспроизведению независимой группой. Краткий первичный абстракт не подтверждает все детали исходного текста о гемодинамике префронтальной коры и конкретном «улучшении Stroop»; близкие опыты NIRS нельзя автоматически присоединять к этому испытанию. Публикация Nakano 2009 о PQQ и CoQ10 рассматривается отдельно: если группа получает комбинацию, вклад двух веществ и их взаимодействие не выявляются сравнением только с плацебо. Следовательно, «синергия в 2,2 раза» не является надёжно установленным эффектом одного PQQ.
Nakano и соавторы также наблюдали 17 взрослых после восьми недель приёма PQQ и описали изменения субъективных шкал сна, утомляемости и настроения. Работа полезна как сигнал для планирования контролируемого испытания, но открытый дизайн и самоотчёты уязвимы к ожиданиям участников и изменению состояния со временем. Питтсбургский индекс качества сна (PSQI) оценивает субъективное качество, а не полисомнографическую архитектуру стадий; по нему нельзя заключать о «углублении сна» или нормализации циркадного ритма. Конкретные значения PSQI, латентности сна, LF/HF и кортизола в исходнике требуют проверки по таблицам статьи и потому не воспроизводятся как удостоверенные результаты.
| Первичный материал | Дизайн и измеренный исход | Допустимый вывод |
|---|---|---|
| Harris 2013 | Малая краткосрочная группа здоровых добровольцев; воспалительные и мочевые метаболомные показатели. | Возможен биомаркерный сигнал; клиническая польза не установлена. |
| Itoh 2016 | 41 здоровый пожилой участник, рандомизированное плацебо-контролируемое испытание; когнитивные тесты. | Нужны независимое воспроизведение и оценка множественных сравнений. |
| Nakano 2012 | 17 взрослых, восемь недель, субъективные шкалы без убедительного плацебо-контроля. | Нельзя утверждать изменение физиологической архитектуры сна. |
Сопоставлять этот материал с митохондриальными и циркадными механизмами мелатонина полезно именно по различию конечных точек: сходные слова «митохондрии» и «сон» не означают общего доказанного лечебного действия.
Бактериальный путь биосинтеза PQQ начинается с короткого пептида PqqA, содержащего остатки Glu и Tyr. Белок PqqD представляет этот предшественник ферменту PqqE семейства radical-SAM; образование C–C-связи между остатками создаёт основу будущего хинонового скелета. В последующих превращениях участвуют PqqB и PqqC, причём последняя стадия связана с окислительным формированием зрелого кофактора. Состав и организация генетических кластеров различаются между бактериями; короткая подпись «pqqA–E» описывает базовую схему, а не единственный промышленный штамм или полный перечень вспомогательных генов. При производстве возможны ферментация, очистка и перевод в динатриевую соль, но заявленные исходником конкретные выходы химического синтеза, состав растворителей, неизменная чистота >99% и эксклюзивный «золотой стандарт» одной технологии не подтверждены его биохимическими источниками.
Различие свободной кислоты и динатриевой соли важно для пересчёта массы дозы, растворимости и сравнения анализов. Пищевая разрешительная оценка относится к определённому ингредиенту, способу производства, спецификации и предполагаемому уровню потребления; она не является одобрением PQQ как лекарства от сердечной или неврологической болезни. В пищевой матрице PQQ присутствует в небольших количествах, однако анализ осложняют низкая концентрация, белковые аддукты и условия пробоподготовки. Для человека остаются пробелы в балансе всасывания, связывания с белками, тканевом распределении, метаболитах и почечном выведении при разных формах вещества. Исходные точные «60–80% абсорбции», «пиковая концентрация через 1–2 часа», «период полувыведения 8–12 часов» и утверждение о преодолении гематоэнцефалического барьера не имеют в данном наборе клинической фармакокинетики с ясной методикой и потому не переносятся в рекомендации.
В опытах Nakano и соавторов с динатриевой солью BioPQQ использовали острое введение, предварительные 14- и 28-дневные серии и 13-недельное повторное пероральное введение крысам. Авторы сообщили признаки почечного воздействия в отдельных сериях с высокими дозами у самок, включая изменение относительной массы почек, белок и кристаллы в моче; в период восстановления эти находки разрешались. Для 13-недельного протокола они указали NOAEL 100 мг/кг массы тела в сутки, причём это была наибольшая исследованная доза в той серии. Исходная фраза о дозах 100, 200 и 400 мг/кг в данном конкретном исследовании противоречит его первичному абстракту.
NOAEL относится к виду животных, конкретной соли, длительности и набору измеренных исходов. Пересчёт по площади поверхности тела может служить одним этапом токсикологической оценки, но результат не даёт «55-кратного клинического запаса» без выбора неопределённостей, хронической экспозиции и человеческих данных. Старые сообщения о поражении почек при иных путях или больших дозах нельзя объявлять «мифом»; столь же необоснованно считать PQQ доказанным нефропротектором человека. На текущем клиническом массиве нельзя установить безопасность многомесячных высоких доз, при беременности, почечной недостаточности или сложной лекарственной терапии. Мониторинг каждые шесть месяцев и порог 40 мг/сутки в исходнике предложены без валидированного протокола и не становятся здесь назначением.
Физиологическая взаимодополняемость PQQ и CoQ10 звучит правдоподобно: убихинон переносит электроны между комплексами I/II и III, тогда как PQQ в клеточной модели меняет сигналы биогенеза. Но не показано, что PQQ после приёма «удваивает митохондрии», непосредственно восстанавливает убихинон во внутренней мембране или что комбинация клинически превосходит каждое вещество в факторном сравнении. То же касается наборов с ацетил-L-карнитином, ресвератролом, NMN/NR и α-липоевой кислотой: наличие дополняющих друг друга схем на бумаге не определяет пользу, безопасность и дозу смеси. Отдельно ацетил-L-карнитин нужен для корректного понимания переноса ацетильных групп; он не переносит длинноцепочечные жирные кислоты через CPT1 автоматически, как утверждал исходный «стек».
PQQ — структурно определённый бактериальный редокс-кофактор и полезный экспериментальный инструмент для исследования клеточной биоэнергетики. Наиболее содержательное механистическое основание для гипотезы митохондриального биогенеза дают измерения в Hepa1-6 с выключением CREB и PGC-1α; животные модели сердца и нервной ткани добавляют доклинические сигналы, но используют иные способы введения и контексты повреждения. Человеческие данные пока ограничены малыми и неодинаково контролируемыми работами с промежуточными исходами. Следующие исследования должны связать измеренную тканевую экспозицию с мишенью, подтвердить эффект независимым факторным дизайном и заранее определить клинически значимые конечные точки. До этого ни «витаминный статус», ни лечебные протоколы для инфаркта, деменции и диабета не следуют из рассмотренной литературы.
Это нарративный обзор PQQ на основе литературной подборки из 35 публикаций. В редакции от 4 октября 2026 года адресно сверены отдельные ключевые работы по клеточной оси CREB–PGC-1α, экспериментальной кардиопротекции, токсикологии и библиографические несоответствия. Систематический поиск по заранее заданному протоколу, метаанализ и формальная оценка риска смещения каждой работы не проводились; список источников не следует считать исчерпывающим.
Редокс-химия, изменения экспрессии генов в клеточной линии и действие в животной модели рассматриваются отдельно от клинических результатов. Концентрация в культуре и доза животному не определяют эффективный режим для человека. При интерпретации небольших и неоднородных исследований людей важны популяция, форма вещества, длительность и конечная точка. Механистическая согласованность не устанавливает долгосрочной клинической пользы или тканевой фармакокинетики.
Это подтверждённый кофактор ряда бактериальных ферментов; обязательный PQQ-зависимый фермент и синдром дефицита человека не установлены.
Ключевой опыт с CREB и PGC-1α проведён на клетках мышиной печени при заданной экспозиции. Сопоставимое тканевое действие после обычного перорального приёма у человека не показано.
Уменьшение зоны повреждения показано у крыс при парентеральном введении. Клиническая эффективность и лечебная дозировка после инфаркта не установлены.
Есть небольшие и неодинаково контролируемые исследования с тестами или самоотчётами. Они не доказывают профилактику деменции или изменение физиологической архитектуры сна.
Нет. Он ограничен формой вещества, видом животных и продолжительностью опыта; для человеческой безопасности и конкретной дозы нужны отдельные данные.