PQQ: митохондриялық биогенез және дәлелдердің шектері — NutriFit
Пирролохинолинхинон (PQQ): редокс-химия, CREB–PGC-1α және клиникалық деректердің шектері
Бактериялық хинон кофакторынан және жасушалық митохондрия биогенезінен жүрек пен ми модельдеріне, адамдағы шағын зерттеулерге және токсикологиялық шектеулерге дейін.
Пирролохинолинхинон (PQQ, метоксантин) бактериялық энзимология мен сүтқоректілердің эксперименттік биологиясы арасындағы ерекше орын алады. Ол бірқатар бактериялық дегидрогеназалар үшін шынайы редокс-кофактор; жасуша дақылдары мен жануарларда PQQ әсері митохондрия қызметінің көрсеткіштерін өзгертеді. Алайда бұл бақылаулар PQQ-ды адамға қажетті дәрумен, митохондрия ішіндегі әмбебап антиоксидант немесе ишемияны, нейродегенерацияны, метаболизм ауруларын емдеудің дәлелденген құралы деп тануға негіз бермейді. Кейінгі әдебиетті түсіну үшін химиялық мүмкіндік, өлшенген жасушалық жауап және клиникалық нәтиженің айырмасын сақтау қажет.
PQQ қалай ашылды және дәрумен туралы пікірталас неге әлі жалғасады
PQQ тарихы белсенділігін әдеттегі NAD(P)- және флавинге тәуелді сызбалармен түсіндіру мүмкін болмаған бактериялық дегидрогеназалардан басталды. Метилотроф хинопротеиндерін зерттеу төмен молекулалы жаңа кофакторды бөліп алуға әкелді; Salisbury және әріптестерінің құрылымдық жұмысы оған «метоксантин» атауын бекітті. Метанолдегидрогеназада кофактор металл ионының қатысуымен ақуыздың белсенді орталығында ұсталып, субстраттан физиологиялық акцепторға тотықсыздандырғыш эквиваленттерді тасымалдайды. Ферментпен байланысқан бұл орта жасуша өсіретін ортаға қосылған немесе ауыз арқылы қабылданған бос PQQ-дан түбегейлі ерекшеленеді: концентрация, редокс-серіктестер және бәсекелес реакциялар әртүрлі.
Kasahara мен Kato-ның PQQ сүтқоректілердегі лизин катаболизмі ферментінің кофакторы болуы мүмкін деген хабарламасы «жаңа дәрумен» туралы пікірталас туғызды. Кейін Felton мен Anthony жариялаған сыни талдау осындай кофактордың сәйкестендірілуіне күмән келтірді. Митохондриялық ДНҚ мөлшері мен кейбір метаболизм көрсеткіштері өзгерген кеміргіштердің диеталық тәжірибелері модельдің рацион құрамына биологиялық сезімтал екенін көрсетеді, бірақ өздігінен міндетті PQQ-тәуелді реакцияны, тапшылық синдромын немесе адамға қажетті мөлшерді анықтамайды. «B14 дәрумені» бейресми атау болып қала береді, ал «ұзақ өмір дәрумені» гипотезасы — ұзақ мерзімді тамақтану әсерлерін зерттеу шеңбері, PQQ-дың міндетті екендігін мойындау емес.
Бактериялар PQQ синтездейді, ал өсімдіктер мен тағамдарда ол аз мөлшерде болуы мүмкін. Сүтқоректілерде белгілі бактериялық биосинтез жолының болмауы тағамнан түсу мүмкіндігімен үйлеседі, бірақ микробтық PQQ ядролық және митохондриялық жүйелер арасындағы эволюциялық тұрғыдан бекіген сигнал екенін дәлелдемейді. Бұл тартымды гипотезаны тек тіндерде нақты қосылыстың қолжетімділігі, оны тану және физиологиялық жауаптың in vivo концентрацияға тәуелділігі туралы деректермен тексеруге болады.
Хинон қаңқасы және редокс-уәжінің шектері
PQQ молекуласының формуласы — C14H6N2O8; бос қышқыл үшін молярлық массасы шамамен 330,21г/моль. Оның конденсацияланған ароматты жүйесінде орто-хинон фрагменті мен үш карбоксил тобы бар. C4 және C5 орындары хинонның екі электронмен гидрохинон түріне тотықсыздануына қатысады; бір электронды кезеңде семихинон аралық өнімі түзіледі. Протонданған және депротонданған түрлердің нақты қатынасы pH пен ортаға тәуелді, ал динатрий тұзы массасы мен ерігіштігі бойынша бос қышқылдан өзгеше. Сондықтан химиялық түрін көрсетпей құрылымдық формуланы, аналитикалық концентрацияны және қоспа массасын араластыруға болмайды.
PQQ+e−⇌PQQ∙−,PQQ∙−+e−+2H+⇌PQQH2.
Электрон доноры мен акцепторы барда тотыққан және тотықсызданған түрлер бірнеше рет бір-біріне ауыса алады. Бірақ цикл саны — белгіленген реагенттері мен бақылау уақыты бар нақты тәжірибенің қасиеті, тіндегі молекуланың өзгермейтін «сыйымдылығы» емес. Бастапқы «PQQ 20 000 цикл, C және E дәрумендері бірнеше цикл ғана» деген салыстыру бірдей жағдайларды анықтамайды және Paz еңбегімен әмбебап биологиялық тұрақты ретінде расталмайды. Аскорбат пен токоферол да байланысқан жасушалық жүйелер арқылы қайта қалпына келеді, сондықтан оларды мұндай кестемен ранжирлеу ғылыми тұрғыдан дұрыс емес.
Хинон химиясы бос радикалдарды шартсыз жұтумен бірдей емес. Әртүрлі жағдайда PQQ, аминқышқылдары, ақуыздар және оттегі арасында электрон тасымалдануы тотықтырғыштың тотықсыздануымен де, белсенді оттегі түрлерінің түзілуімен де қатар жүруі мүмкін. Жасушадағы реакция үшін реагенттердің концентрациясы, бәсекелес ферменттік жолдардың жылдамдығы, орналасуы, тотықсыздандырғыштың қолжетімділігі және металдар катализдейтін жанама үдерістер маңызды. Сондықтан супероксидті, гидроксил радикалын және пероксинитритті тікелей «ұстап қалу» формулалары ауыз арқылы қабылданған PQQ тиісті митохондриялық микродоменге жетіп, онда супероксиддисмутаза немесе пероксиредоксиндерден тиімдірек болатынын дәлелдемейді.
Үш карбоксил тобы молекуланың полярлығын арттырып, ерігіштікке, ақуыздармен байланысуға және мембранадан өтуге қышқыл-негіз күйін маңызды етеді. Бейтарапқа жақын pH-та иондалған түрлер басым болса да, нақты ортада өлшенген pKa мәндерінсіз әр микрокүйдің үлесін анықтау мүмкін емес; бастапқы 1,6, 2,2 және 4,3 мәндерін цитозоль тұрақтылары деп автоматты түрде қабылдауға болмайды. Хинон потенциалы да протондануға тәуелді: Нернст теңдеуі бақыланатын потенциалды тотыққан және тотықсызданған түрлер мен H+ белсенділіктерімен байланыстырады, әр компартментке арналған жалғыз әмбебап E∘ белгілемейді. Бұл физикалық химия ықтимал прооксиданттық реакцияларды талқылағанда маңызды: бос хинонда, байланысқан кофакторда және аминқышқылымен күрделі аддуктта электрондардың қолжетімділігі әртүрлі.
Хинопротеин дегидрогеназасында ақуыз субстратты, PQQ мен металл ионын бағдарлап, электрондарды белгіленген физиологиялық жолмен әрі қарай өткізеді. Бос PQQ-да мұндай каталитикалық қаңқа жоқ. Сондықтан «псевдофермент» атауы ерітіндідегі реакцияға ұқсастық ретінде ғана жарайды, жаңа адам ферментінің анықтамасы емес. Радикалмен элементар реакцияның жылдамдық тұрақтысы жоғары болған күннің өзінде, оның жасушалық ағынға қосатын үлесі сол көлемдегі SOD, каталаза, пероксиредоксиндер және глутатион жүйесінің бәсекелес реакцияларымен салыстырғандағы k[PQQ][радикал] көбейтіндісімен анықталады.
Бақылау деңгейі
Нені қорытындылауға болады
Нені қорытындылауға болмайды
Бактериялық хинопротеин
Ақуызға байланысқан PQQ электрондарды каталитикалық тасымалдауға қатысады.
Бос PQQ адам митохондриясында дәл сондай цикл атқарады.
Ерітіндідегі реакция
Хинон, семихинон және хинол түрлері болуы мүмкін; жылдамдық ортаға тәуелді.
Ерітіндідегі тұрақты ауыз арқылы қабылдағаннан кейін тін қорғанысын сипаттайды.
Жасуша дақылы
Экспозиция ROS, тыныс алу және ген экспрессиясын өзгертуі мүмкін.
Өлшенген өзгеріс адамдарда аурудың алдын алатынын дәлелдейді.
Жасушалық сигнал: CREB, PGC-1α және митохондрия геномы
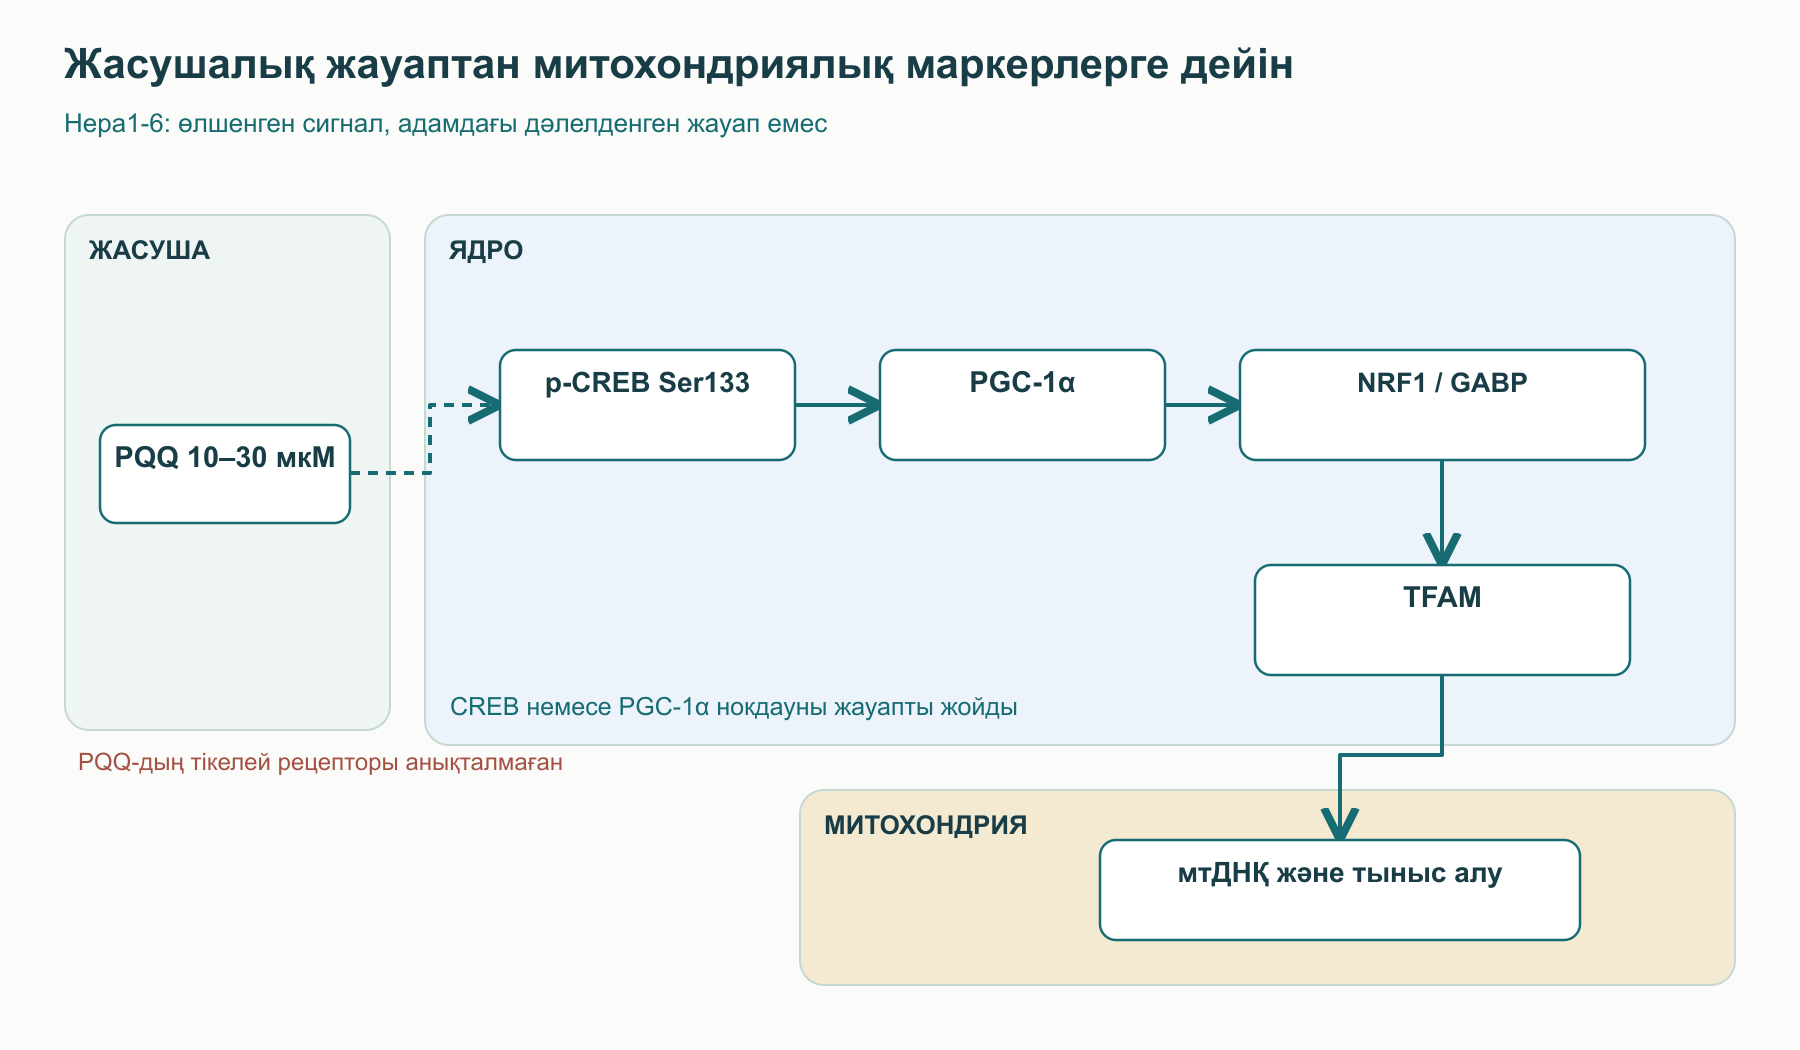
Chowanadisai және әріптестерінің негізгі тәжірибесі көбіне тышқан бауырының Hepa1-6 жасушаларында жүргізілді: PQQ 10–30мкмоль/л концентрациясында 24–48 сағат әсер еткенде цитратсинтаза мен цитохром-c-оксидаза белсенділігі, Mitotracker боялуы, митохондриялық ДНҚ-ның ядролық ДНҚ-ға қатынасы және оттегіні тұтыну артқан. Авторлар CREB-тің Ser133 бойынша фосфорлануын, Ppargc1a промоторының белсенуін және PGC-1α мРНҚ-сы мен ақуызының көбеюін байқады. CREB немесе PGC-1α-ны siRNA арқылы нокдаун жасау митохондриялық маркерлер индукциясын жойды; бұл жай корреляциядан әлдеқайда күшті дәлел: осы модельде PQQ жауабы үшін екі буын да қажет. Дегенмен бұл тәжірибе әдеттегі ауыз арқылы қабылданатын мөлшер адам гепатоциттерінде салыстырмалы экспозиция туғызатынын көрсетпейді.
CREB — Ser133 бойынша фосфорланғаннан кейін белгілі промоторлық жағдайларда CBP/p300 коактиваторларын тарта алатын транскрипциялық фактор. Канондық cAMP–PKA–CREB сызбасы сигналдың ықтимал жоғарғы бөлігін түсінуге көмектеседі, бірақ фосфорланған CREB-ті байқау PQQ аденилатциклазасымен немесе нақты G-ақуыз суббірлігімен тікелей байланысатынын, не әр аралық қадамның міндетті екенін өздігінен дәлелдемейді. Бұл модельде «CREB белсенген» деген бақылауды PQQ-дың анықталған молекулалық рецепторымен теңестіруге болмайды. Фосфорлану реакциясында PKA ATP-ны ақуызға фосфат тобын көшіру үшін пайдаланады, ал PQQ реакция субстраты емес:
Уақыт ретін де ескеру керек: транскрипциялық фактор фосфорлануының ерте өзгеруі, Ppargc1a мРНҚ-сының кейінгі өзгерісі, ақуыздың артуы және бір тәуліктен соңғы өзгерген митохондриялық құрам маркерлері себептік тізбектің әр деңгейін білдіреді. Егер тек 24–48 сағаттан кейінгі соңғы маркерлер өлшенсе, cAMP немесе аденилатциклаза белсенділігінің минуттық кинетикасын қайта құрастыру мүмкін емес. Тікелей жолды анықтау үшін селективті тежегіштер не ұсынылған киназаны генетикалық өшіру, екінші хабаршыны сандық өлшеу және бейспецификалық жасушалық стресс бақылауы қажет. Бастапқы мәтінде cAMP-тың 10–15 минутта көтерілуі дәлелденгендей берілген, алайда келтірілген Chowanadisai абстракты CREB Ser133 пен оған тәуелділікті растайды, бірақ мұндай уақыттық ретті растамайды.
CREB−OH+ATPPKACREB−OPO32−+ADP.
PPARGC1A өнімі PGC-1α ДНҚ-мен өздігінен байланыспайды. Ол ядролық транскрипциялық факторларды, соның ішінде NRF1, GABP/NRF2, ERR және PPAR-ды коактивациялайды; серіктестер жиынтығы тін мен метаболизм күйіне қарай өзгереді. Тарихи «ядролық тыныс алу факторы 2» деп аталған GABP пен антиоксиданттық жауап факторы NFE2L2/NRF2-ні ажырату маңызды: бірдей «NRF2» қысқартуы әртүрлі ақуыздарды білдіреді. Жасушалық тәжірибеде PQQ NRF1 және GABP белсенділігін, сондай-ақ Tfam, Tfb1m, Tfb2m экспрессиясын арттырған; бұл ядролық транскрипция мен митохондриялық жауап арасындағы байланысты қолдайды, бірақ тыныс алу тізбегінің әр ақуыз суббірлігі көбейді деген өлшем емес.
TFAM прекурсоры цитозоль рибосомаларында түзіліп, TOM және TIM кешендері арқылы ішкі компартменттерге бағытталады да, өңдеуден кейін матриксте қызмет етеді. Ол мтДНҚ-ны нуклеоидтерге жинақтап, митохондриялық РНҚ-полимераза POLRMT және TFB факторларымен бірге транскрипция басталуына қатысады. Адамның митохондриялық геномы тотығу фосфорлануының 13 полипептидін кодтайды: I кешенінің жеті ND суббірлігі, III кешенінің цитохром b, IV кешенінің үш COX суббірлігі және V кешенінің ATP6/ATP8; II кешені толықтай ядролық геноммен кодталады. Tfam экспрессиясы мен мтДНҚ/ядролық ДНҚ қатынасының артуы 13 өнімнің бәрі автоматты түрде көбейгенін, кешендер дұрыс жиналғанын немесе бір оттегі молекуласына шаққандағы ATP шығысы артқанын дәлелдемейді.
Импорт пен жинақталу ретін компартменттер бойынша ажырату керек. Ядро кодтайтын TFAM сыртқы мембранадан TOM кешені, ішкі мембранадан импорт механизмі арқылы өтеді; одан соң матриксте оның сигналдық пептиді кесіліп, TFAM митохондриялық ДНҚ-мен әрекеттеседі. Митохондриялық LSP және HSP промоторлары полицистрондық прекурсорлардың транскрипциясын қамтамасыз етеді; кейін олар өңделіп, митохондриялық рибосомаларда трансляцияланады. Функциялық кешендер үшін бұларға қоса ондаған ядро кодтайтын суббірлік, олардың импорты, жинақталу факторлары, темір-күкірт орталықтары, гем топтары және жарамды липидтік орта қажет. Демек, TFAM мен митохондриялық ДНҚ өлшемдері биогенез дәлелінің маңызды, бірақ толық емес бөлігі.
Кристалар пішіні, кардиолипин мөлшері, MICOS, MFN1/MFN2/OPA1 арқылы қосылу мен DRP1 арқылы бөлінудің тепе-теңдігі, сондай-ақ PINK1/Parkin-ге тәуелді митофагия митохондрия желісінің сапасына ықпал етуі мүмкін. Бірақ бұл құрылымдардың жалпы физиологиялық маңызы Chowanadisai тәжірибесінде дәл PQQ әр буынды өзгертті деген тікелей дәлел емес. «Биогенезді» іс жүзінде өлшенген белгілер — фермент белсенділігі, боялу, мтДНҚ және тыныс алу — арқылы сипаттаған жөн; жеке маркер қызмет атқаратын органеллалардың толық жиналуын өлшемейді.
Тыныс алу тізбегі, мембрана потенциалы және өткізгіштік ауысуы
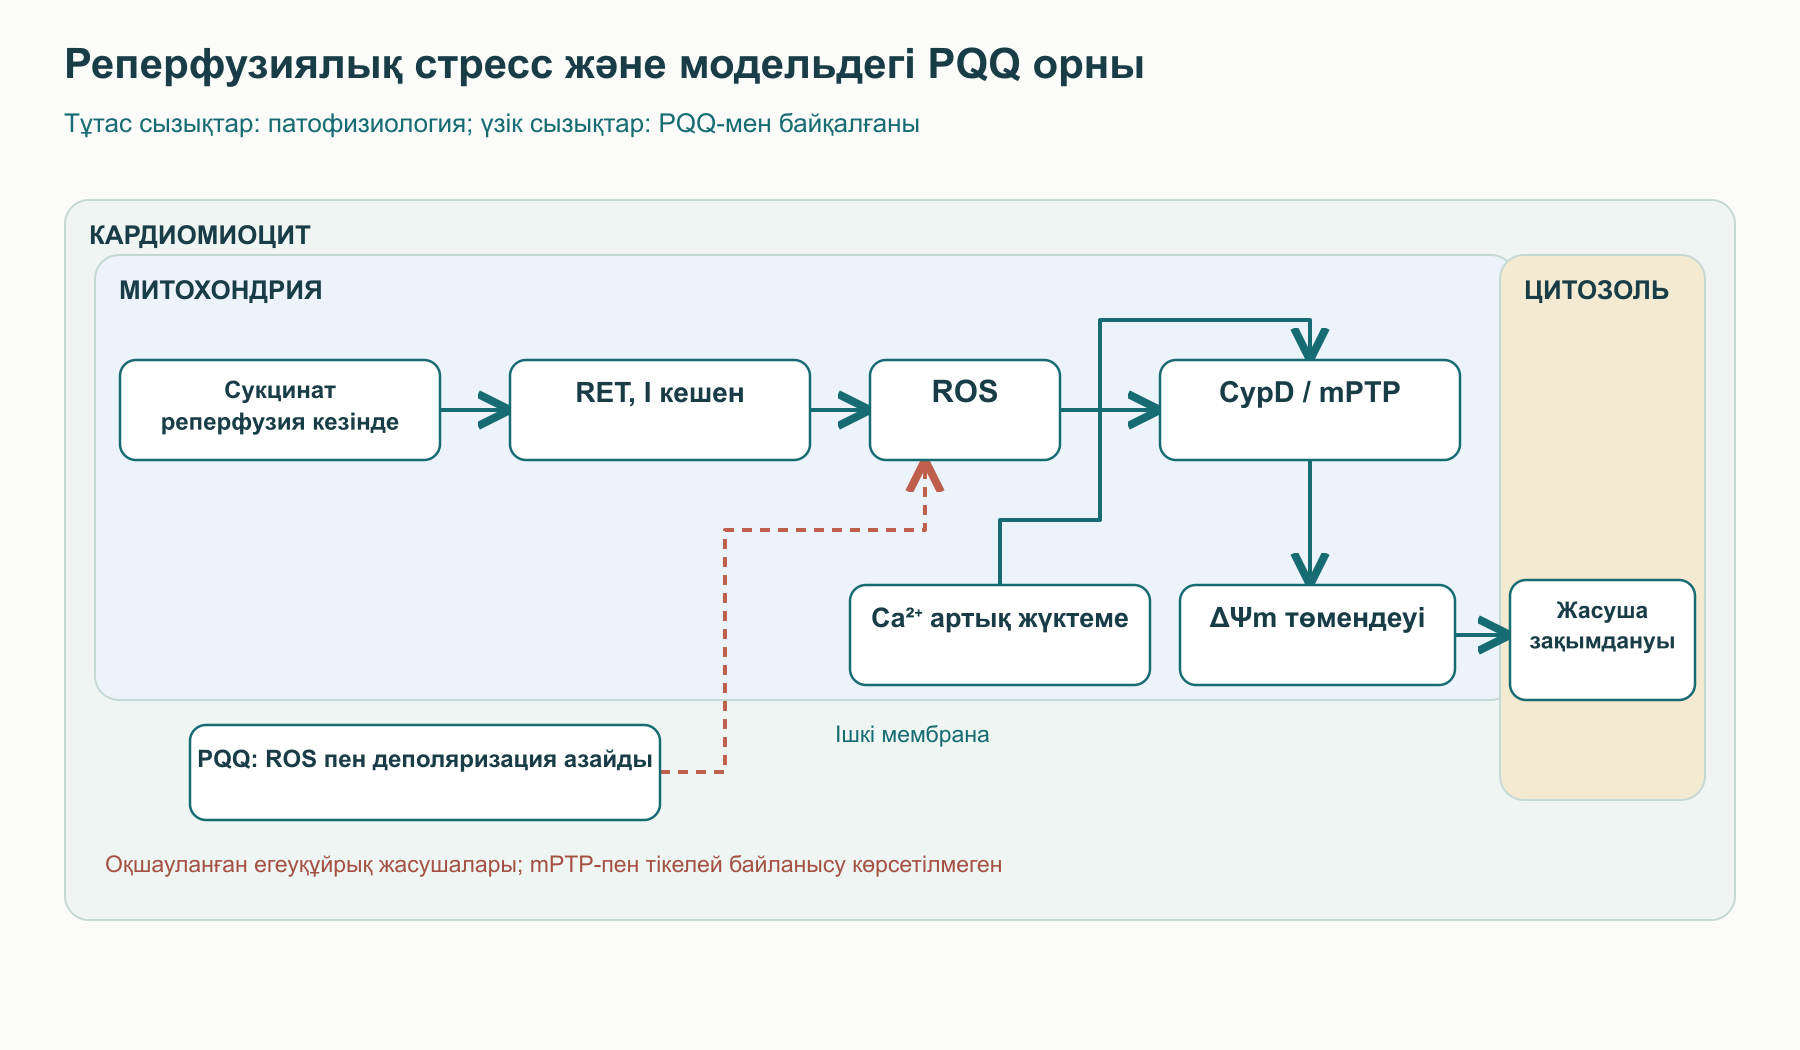
NADH және FADH₂ электрондары тыныс алу тізбегіне I және II кешендері арқылы кіреді, содан кейін убихинон, III кешен, цитохром c және IV кешен арқылы оттегіге өтеді. I, III және IV кешендері ATP-синтаза ADP-ны фосфорлау үшін пайдаланатын протондардың электрохимиялық градиентін қалыптастырады. Кей жағдайда тотықсызданған аралық тасымалдаушылар электронды оттегіге беріп, супероксид түзеді; мұндай ағып шығудың орны мен жылдамдығы субстраттарға, мембрана потенциалына, оттегі режиміне және электрон ағынының бағытына тәуелді. «Оттегінің 0,2–2%-ы» деген әмбебап үлес барлық тіндер мен жағдайды сипаттамайды. Реперфузия кезінде сукцинат жиналып, мембрана потенциалы жоғары болса, электрондардың I кешеніне кері тасымалы және ROS-тың қысқа мерзімді күрт өсуі қолдау табуы мүмкін. Бұл — реперфузия моделіне тән механизм, әр жасушаның қартаюынан міндетті түрде туатын әсер емес.
Протон қозғаушы күш электрлік және химиялық құрамдастарды біріктіреді: градиент бағыты мен температура көрсетілген жағдайда Δp=ΔΨm−(2,303RT/F)ΔpH. pH бірлігіне шамамен 59мВ мәні тек белгілі бір температурада алынады, сондықтан оны шартсыз тұрақты деп қолдануға болмайды. Ұзақ оттегі тапшылығы, кальцийдің шамадан тыс жүктелуі және липидтердің тотығуы түйісуді бұзып, ΔΨm төмендетіп, ATP-синтазаны кері бағытта жұмыс істеуге мәжбүр етуі мүмкін. Бірақ митохондриялық маркерлердің көбеюі жақсырақ түйісуді немесе ROS аз өндірілуін кепілдемейді.
Митохондриялық өткізгіштік ауысуы (mPTP) — кальций мен редокс күйіне сезімтал ішкі мембрана өткізгіштігінің артуы; ол матрикстің ісінуіне, ΔΨm жоғалуына және ауыр зақымда сыртқы мембрана жарылуына әкеледі. Циклофилин D (PPIF) ауысу ықтималдығын реттейді; ANT пен ATP-синтаза құрамдастарының қатысуы талқылануда, ал «VDAC–ANT–CypD — дәлелденген бір арна» деген канондық сызба шектен тыс нақты. Цитохром c цитозольге шыққанда APAF1, dATP/ATP және прокаспаза-9 қатысатын апоптосома жиналуы мүмкін; ал айқын энергетикалық коллапс некроздық зақымдануға бейім. Нәтиже стресс күшіне және қалған ATP мөлшеріне тәуелді.
Оқшауланған кардиомиоциттерде Tao және әріптестері алдын ала PQQ әсері H2O2 туғызған ROS сигналын және деполяризацияны әлсіреткенін көрсетті; салыстырмалы тәжірибеде циклоспорин A да потенциал жоғалуын болдырмады. Нәтиже өткізгіштік ауысуына қатысы бар үдерістерге әсер ету мүмкіндігімен үйлеседі, бірақ PQQ циклофилин D-мен тікелей байланысады, ANT-тің белгілі тиолдарын сақтайды, NCLX қалыпқа келтіреді немесе адамда «саңылауды бөгейді» дегенді дәлелдемейді. Бастапқы мәтіндегі кальцийлік ашылу шегінің үш-төрт есе ығысуы көрсетілген бастапқы тәжірибемен расталмағандықтан алып тасталды. Кардиолипин мен ішкі мембраналар жанасуы құрылымдық тұрғыдан да маңызды, бірақ жеке тәжірибесіз олардың патофизиологиялық рөлін PQQ өлшенген әсері деп көрсетуге болмайды.
SIRT1 көбіне ядрода және цитозольде, ал SIRT3 митохондрия матриксінде әрекет етеді. Олардың деацетилаза реакциялары NAD+-қа тәуелді және никотинамид пен O-ацетил-ADP-рибоза түзеді; SIRT1 PGC-1α ацетилденуін, ал SIRT3 SOD2 және IDH2 сияқты кейбір митохондриялық ферменттердің ацетилденуін өзгерте алады. Huang-тың HepG2 жасушаларындағы жұмысында PQQ-дан кейін SIRT1/SIRT3 экспрессиясы мен белсенділігінің өзгерістері хабарланған. Осы модельде сиртуиндерді өлшеу PQQ адамда NAD+ қолжетімділігін арттырады, көрсетілген ақуыздардың әрқайсын тікелей деацетилдейді немесе бүкіл тыныс алу тізбегін жалғыз міндетті механизммен күшейтеді дегенді дәлелдемейді. Себепті қорытынды үшін нақты субстраттардың ацетилденуі мен ағындарын тәуелсіз өлшеу және тиісті буынды генетикалық сөндіру қажет.
Апигенин аясындағы CD38 және NAD⁺ туралы бөлек талдау NAD⁺ мөлшерін, сиртуин белсенділігін және клиникалық әсерді ажыратуға көмектеседі: биохимиялық атаулардың ұқсастығы екі қоспаны өзара алмастырмалы етпейді.
Жүрек: ишемия, реперфузия және доклиникалық қорғаудың шектері
Коронарлық ишемия кезінде тотығу фосфорлануы төмендеп, лактат пен протондар жиналады, ATP және фосфокреатин азаяды. Na⁺/K⁺-АТФаза, SERCA және ион алмасқыштар жұмысының бұзылуы цитозоль мен митохондриядағы кальцийдің шамадан тыс жүктелуіне ықпал етеді. Реперфузия оттегіні қайта жеткізіп, pH-ты қалыпқа келтіреді, бірақ сукцинаттың артық болуы мен электрон тасымалдау тізбегінің бұзылуы күрт редокс өзгерісін туғызуы мүмкін; кальциймен бірге бұл өткізгіштік ауысуын жеңілдетеді. Бұл сызба тәжірибеде нысана неге таңдалатынын түсіндіреді, бірақ кез келген антиоксидантты миокард инфарктісіне тиімді ем етпейді.
Zhu және әріптестері сол жақ алдыңғы төмендейтін коронарлық артерияны байлағаннан кейін егеуқұйрықтарды зерттеді. Бір модельде реперфузиясыз екі сағат ишемия болды, екіншісінде 17 не 30 минут окклюзиядан кейін екі сағат реперфузия жүргізілді. PQQ окклюзияға дейін құрсақ қуысына немесе реперфузия басталғанда көктамырға берілді; әдеттегі тағамдық дозада ауыз арқылы берілген жоқ. Осы жағдайларда авторлар инфаркт аймағы кішірейіп, ерте қысым көрсеткіштері жақсарғанын хабарлады. Реперфузия моделінде алдын ала енгізу мен реперфузия кезінде енгізу топтарындағы жарияланған қатынастар тиісінше 18,4 ± 2,3% және 25,6 ± 3,5%, бақылауда 38,1 ± 2,6% болды. Бұл сандар авторлардың хаттамасы мен нормалау әдісіне қатысты; бастапқы 55,4 → 26,1% көрсеткіштері мақаланың абстрактына сәйкес келмейді. Бұл нәтиже өлім-жітімнің азаюын, ұзақ мерзімді лақтыру фракциясының жақсаруын немесе клиникалық реперфузиялық емге теңдігін дәлелдемейді.
Tao тәжірибесінде ересек егеуқұйрықтың оқшауланған кардиомиоциттерін PQQ-мен алдын ала инкубациялағаннан кейін H2O2 әсеріне ұшыратты. ROS, тіршілік қабілеті және ΔΨm өлшемдері жасушаны қорғауға сай бірізді сигнал берді; алайда ыдыстағы жедел уытты стресс инфарктінің тамырлық, иммундық және гемодинамикалық құрамдастарын қайталамайды. Егеуқұйрықтарда метопрололмен жасалған жеке салыстыруды клиникалық басымдық дәлелі деп оқуға болмайды: араласулар дозасы, енгізу жолы және механизмі бойынша өзгеше. Бастапқы мәтіндегі LVEF бірнеше ай сақталуы, инфарктіден кейінгі ремоделдену және LVEDP-тың нақты аралықтары туралы тұжырымдар келтірілген қысқа мерзімді тәжірибелермен расталмаған және бұл жерде дәлелденген факт ретінде қайталанбайды.
Жүйке тіні: трофикалық сигналдар, токсин модельдері және ақуыз агрегаттары
Murase пен Yamaguchi-дің ертеректегі еңбектері PQQ және оның туындылары әсер еткен астроглиялық немесе басқа тәжірибелік жүйелердегі жүйке өсу факторының (NGF) өндірілуін зерттеді. NGF TrkA және p75NTR арқылы әсер етеді, ал BDNF негізінен TrkB-мен байланысты; төменгі ағындарда жасушаның тіршілігі мен пластикалылығына қатысты PI3K–Akt және MAPK–ERK каскадтары болуы мүмкін. Бірақ жасушалық NGF жауабы адам миында NGF/BDNF өскенін, алдыңғы базальды холинергиялық нейрондар қалпына келгенін немесе полинейропатия емделетінін білдірмейді. BDNF үшін модель мен концентрация контексті аса маңызды: NGF зерттеулеріндегі әсерді оған автоматты түрде көшіруге болмайды.
6-гидроксидофамин катехоламинергиялық жасушаларды тотығу реакциялары мен хиноид өнімдері арқылы зақымдайды, ал ротенон I кешенін тежеп, энергетикалық және редокс-стресс туғызады. Hara, Qin және Martin жұмыстары жасуша дақылдары мен токсин модельдерінде PQQ-дың нейропротекторлық сигналдарын, оның ішінде ROS, тіршілік қабілеті және жануарлардың қимыл-қозғалыс көрсеткіштерін сипаттайды. Токсин модельдері Паркинсон ауруының механизмдерін талдауға көмектеседі, бірақ адамның созылмалы патологиясын толық қайталамайды; олардағы нәтижені пациенттерде substantia nigra нейрондары сақталады деген уәдеге айналдыруға болмайды. DJ-1-мен тікелей байланысу, тирозингидроксилазаның қалпына келуі және нақты мінез-құлық нәтижелері бір әмбебап тізбекке біріктірілмей, әр тәжірибемен бөлек байланыстырылуы керек.
Рекомбинантты α-синуклеинде Kobayashi және әріптестері PQQ қосылғанда фибрилдер түзілуі тежелгенін байқады; Kim және әріптестері Aβ қоса амилоид түзетін ақуыздарды in vitro зерттеді. Тиофлавин флуоресценциясы, электрондық микроскопия және құрылымдық әдістер пробиркадағы агрегацияны сипаттайды, бірақ жетілген фибрилдер сигналының төмендеуі уытты еритін олигомерлер жоқтығына, одан да бетер микроглия оларды тазартатынына кепіл емес. Сондықтан Aβ-дағы Lys16/Lys28 қалдықтарын ковалентті қорғау, бар бляшкаларды толық деполимерлеу және Альцгеймер ауруын емдеу туралы тұжырымдар басқа деректі қажет етеді. Zhang жасуша моделінде Aβ уыттылығы әлсірегенін хабарлады, бірақ ол адам миындағы бос PQQ-дың қажетті концентрациясын анықтамайды.
Aizenman және әріптестері PQQ мен NMDA-рецептор жауабының редокс арқылы модуляцияланатын бөлігі арасындағы өзара әсерді көрсетті. Рецептордың цистеин қалдықтары арнаның редокс ортасына сезімталдығын өзгерте алады; глутаматтық эксайтотоксикалық жағдайда Ca²⁺ шамадан тыс кіруі кальпаиндерді, фосфолипазаларды және NO-синтазаны белсендіреді. Бұл — қисынды тәжірибелік контекст, бірақ бастапқы мәтіндегі нақты цистеин жұбының бір PQQ молекуласымен тікелей тотығуының дәл стехиометриясын, физиологиялық пластикалылыққа қатысты қауіпсіз таңдамалылықты немесе инсульттегі тиімділікті растамайды.
Метаболизм және қабыну: механизм мен нәтижені ажырату
AMPK жасушаның энергетикалық күйіне жауап беріп, ACC-ны фосфорлау арқылы малонил-КоА түзілуін азайтады; малонил-КоА CPT1-ді тежеп, ұзын тізбекті ацилдердің митохондриялық β-тотығуға қолжетімділігін реттейді. Бұлшықетте AMPK-тәуелді сигнал TBC1D4/AS160 пен Rab ақуыздарын реттеу арқылы GLUT4 транслокациясын қолдауы мүмкін. Ал PGC-1α PPAR және басқа факторлар арқылы тотығу метаболизмі бағдарламаларын коактивациялайды. Бұл физиологиялық желі PQQ зерттеулерінде қандай нәтижелерді өлшеу керегін түсіндіреді, бірақ PQQ AMPK-ны Thr172 бойынша тікелей белсендіреді, диабеті бар адамдарда IRS1 сезімталдығын қалпына келтіреді немесе клиникалық глюкоза пайдалануды арттырады дегенді өздігінен көрсетпейді. Мұндай қорытынды үшін тіндік ағындар, метаболизм сынамалары және адамдарда бақыланатын зерттеулер керек.
Май қышқылдарының митохондрияға кіру энзимологиясы карнитин-пальмитоилтрансфераза CPT1 туралы бөлек материалда талданады. Оның механизмі PQQ гипотезасына пайдалы шекара береді: транскрипциялық гипотеза ацил тасымалы мен β-тотығу жылдамдығын өлшеуді алмастырмайды.
Митохондриялық стресс ROS, мтДНҚ бөлінуі, NF-κB және NLRP3 инфламмасомасы арқылы қабынуды жалғастыруы мүмкін. NLRP3 белсенуі каспаза-1 жетілуі мен IL-1β/IL-18 өңделуіне ықпал етеді; IκBα–NF-κB сигналын тежеу теория жүзінде көптеген қабыну гендерінің экспрессиясын өзгерте алады. Алайда тиісті тіндік дерексіз дені сау қатысушылардағы сарысулық CRP немесе IL-6 өзгерісін олардың микроглиясында NLRP3 тікелей тежелді деп түсіндіруге болмайды. Inflammaging кең ауқымды жасқа байланысты құбылысты сипаттайды, PQQ үшін белгіленген көрсетілім емес.
Адамдар қатысқан зерттеулер нені көрсетеді
PQQ бойынша клиникалық деректер доклиникалық модельдер жиынтығынан әлдеқайда аз және зерттеу дизайны бойынша әркелкі. Бастапқы мәтінде аталған барлық жарияланымды рандомизацияланған қос соқыр сынақ деуге болмайды: кейбірі шағын, кейбірі ашық дизайнда, ал кейбірінде заттар комбинациясы қолданылған. Олардың соңғы нүктелері — биомаркерлер, когнитивтік тест нәтижелері және қатысушылардың өз есебі; инфарктінің, деменция үдеуінің не өлімнің алдын алу емес. Нәтижені түсіндіргенде PQQ экспозициясын, өнім түрін, бақылау тобын және зерттелген популяцияны бөлек қарастыру керек.
Harris және әріптестері PQQ-ды бір рет және қысқа мерзім қайталап қабылдаған дені сау еріктілердің шағын тобын зерттеді; метаболомдық және қабыну маркерлеріне жасалған талдау ізденіс сипатында болды. Қабыну көрсеткіштері мен несеп метаболиттерінің кейбір өзгерістері хабарланған, бірақ жеткілікті бақыланған клиникалық соңғы нүктенің болмауы созылмалы қабыну емделеді деген қорытындыға мүмкіндік бермейді. Органикалық қышқылдардың шығарылуы өзгеруі бұлшықеттегі митохондриялық түйісу тиімділігін немесе ATP синтезін тікелей өлшемейді. Бастапқы мәтінде осы жұмысқа қате идентификатор берілген: дұрыс PMID — 24231099, DOI 10.1016/j.jnutbio.2013.07.008. Сондықтан хаттамамен және бақылау салыстыруымен расталмайтын «76 сағатта hs-CRP 45%-ға төмендеді» деген нақты мәлімдеме қайталанатын клиникалық әсер ретінде берілмейді.
Itoh және әріптестерінің жарияланымында PQQ динатрий тұзының рандомизацияланған қос соқыр плацебо-бақыланатын зерттеуіне дені сау 41 егде қатысушы енгізілді. Мұндай таңдамалы когнитивтік көрсеткіштердің өзгеруі гипотеза туғызады, бірақ бірнеше тесті, бастапқы деңгейін, әсер шамасын және тәуелсіз топтағы қайталануын ескеруді қажет етеді. Қысқа бастапқы абстракт бастапқы мәтіндегі префронтал қыртыс гемодинамикасы мен нақты «Stroop жақсаруы» жөніндегі барлық егжей-тегжейді растамайды; жақын NIRS тәжірибелерін осы сынаққа автоматты түрде қосуға болмайды. Nakano-ның 2009 жылғы PQQ және CoQ10 жарияланымы бөлек қаралады: топ заттар комбинациясын қабылдаса, тек плацебомен салыстыру екі заттың үлесін немесе өзара әрекетін ажыратпайды. Демек, «2,2 есе синергия» бір PQQ-дың сенімді анықталған әсері емес.
Nakano және әріптестері PQQ сегіз апта қабылдаған 17 ересекті де бақылап, ұйқы, шаршау және көңіл күйдің субъективтік шкалаларындағы өзгерістерді сипаттады. Бұл жұмыс бақыланатын сынақты жоспарлауға сигнал бола алады, бірақ ашық дизайн мен өзіндік есептер қатысушылар күтулері мен уақыт ішіндегі жағдай өзгерісіне осал. Питтсбург ұйқы сапасы индексі (PSQI) субъективтік сапаны бағалайды, полисомнографиядағы ұйқы сатыларының құрылымын емес; осы индекс арқылы «ұйқы тереңдеді» немесе циркадтық ырғақ қалыпқа келді деуге болмайды. Бастапқы мәтіндегі PSQI, ұйқы латенттілігі, LF/HF және кортизолдың нақты мәндері мақаланың кестелерімен салыстыруды қажет етеді, сондықтан расталған нәтиже ретінде қайталанбайды.
Бастапқы жұмыс
Дизайн және өлшенген нәтиже
Рұқсат етілетін қорытынды
Harris 2013
Дені сау еріктілердің шағын қысқа мерзімді тобы; қабыну және несеп метаболомикасы көрсеткіштері.
Биомаркер сигналы болуы мүмкін; клиникалық пайда анықталмаған.
Биосинтез, химиялық түрі және фармакокинетикалық белгісіздік
PQQ-дың бактериялық биосинтез жолы Glu және Tyr қалдықтары бар қысқа PqqA пептидінен басталады. PqqD ақуызы осы прекурсорды radical-SAM тұқымдасының PqqE ферментіне ұсынады; қалдықтар арасында C–C байланысының түзілуі болашақ хинон қаңқасының негізін қалайды. Кейінгі өзгерістерге PqqB мен PqqC қатысады, ал соңғы сатыда жетілген кофактор тотығу арқылы қалыптасады. Ген кластерлерінің құрамы мен ұйымдасуы бактериялар арасында әртүрлі; «pqqA–E» қысқаша белгісі негізгі сызбаны сипаттайды, жалғыз өнеркәсіптік штаммды немесе барлық қосымша гендерді емес. Өндірісте ферментация, тазарту және динатрий тұзына айналдыру болуы мүмкін, бірақ бастапқы мәтіндегі нақты химиялық синтез шығымдары, еріткіш құрамы, үнемі >99% тазалық және бір технологияның ерекше «алтын стандарты» деген тұжырымдар биохимиялық дереккөздермен расталмаған.
Бос қышқыл мен динатрий тұзының айырмасы доза массасын есептегенде, ерігіштікті бағалағанда және талдауларды салыстырғанда маңызды. Тағам қауіпсіздігін бағалау нақты ингредиентке, өндіру тәсіліне, спецификацияға және жоспарланған қабылдау деңгейіне қатысты; ол PQQ жүрек немесе неврологиялық ауруға дәрі ретінде мақұлданды дегенді білдірмейді. PQQ тағамда аз мөлшерде кездеседі, бірақ төмен концентрация, ақуыз аддукттері және сынама дайындау жағдайлары талдауды қиындатады. Адамдарда әртүрлі химиялық форма бойынша сіңу балансы, ақуызбен байланысу, тіндерге таралу, метаболиттер және бүйрек арқылы шығарылу туралы деректер әлі жеткіліксіз. Бастапқы мәтіндегі «60–80% сіңу», «1–2 сағатта шыңдық концентрация», «8–12 сағат жартылай шығарылу кезеңі» деген нақты сандар мен гематоэнцефалдық бөгеттен өтеді деген тұжырым бұл деректер жиынтығында әдісі айқын клиникалық фармакокинетикамен расталмаған, сондықтан ұсынымдарға көшірілмейді.
Қауіпсіздік және неліктен доклиникалық NOAEL адам дозасына тең емес
Nakano және әріптестерінің BioPQQ динатрий тұзымен жүргізген тәжірибелерінде жедел енгізу, алдын ала 14 және 28 күндік сериялар, сондай-ақ егеуқұйрықтарға 13 апта қайталап ауыз арқылы енгізу қамтылды. Авторлар кейбір жоғары дозалы серияларда аналықтарда бүйрекке әсер белгілерін, соның ішінде бүйректің салыстырмалы массасы өзгеруін, несепте ақуыз бен кристалдар пайда болуын хабарлады; қалпына келу кезеңінде бұл белгілер басылды. 13 апталық хаттама үшін олар дене массасына шаққанда тәулігіне 100 мг/кг NOAEL көрсетті; бұл сериядағы ең жоғары зерттелген доза еді. Бастапқы мәтіндегі дәл осы зерттеуде 100, 200 және 400 мг/кг сыналды деген сөйлем бастапқы абстрактқа қайшы.
NOAEL жануар түріне, тұздың нақты химиялық түріне, ұзақтығына және өлшенген нәтижелер жиынтығына қатысты. Дене беткей ауданы бойынша аллометриялық есептеу токсикологиялық бағалаудың бір кезеңі болуы мүмкін, бірақ белгісіздік коэффициенттері, созылмалы экспозиция және адам деректері ескерілмесе, «клиникалық қауіпсіздік қоры 55 есе» дегенді бермейді. Басқа енгізу жолы не жоғары дозалардағы ескі бүйрек зақымы туралы хабарларды «миф» деуге болмайды; PQQ-ды адамда дәлелденген нефропротектор деу де негізсіз. Қазіргі клиникалық деректер бірнеше ай бойы жоғары дозалардың, жүктілік кезіндегі, бүйрек жеткіліксіздігі бар немесе күрделі дәрілік емдегі адамдар үшін қауіпсіздігін анықтамайды. Бастапқы мәтіндегі әр алты ай сайын мониторинг жасау және 40 мг/тәулік шегі валидтелген хаттамаға сүйенбейді әрі бұл жерде нұсқау ретінде берілмейді.
PQQ мен CoQ10-ның физиологиялық толықтыруы қисынды көрінеді: убихинон I/II және III кешендері арасында электрон тасымалдайды, ал жасуша моделінде PQQ биогенез сигналдарын өзгертеді. Бірақ ауыз арқылы қабылданған PQQ «митохондрияны екі есе көбейтеді», ішкі мембранадағы убихинонды тікелей тотықсыздандырады немесе факторлық салыстыруда комбинация әр заттан клиникалық тұрғыдан артық деген көрсетілім жоқ. Ацетил-L-карнитин, ресвератрол, NMN/NR және α-липой қышқылы қосылған жинақтарға да қатысты: қағаз жүзіндегі толықтырушы жолдар қоспаның пайдасын, қауіпсіздігін не дозасын анықтамайды. Ацетил-L-карнитин туралы бөлек материал ацетил топтарының тасымалын дұрыс түсінуге көмектеседі; ол бастапқы «стек» тұжырымдағандай ұзын тізбекті май қышқылдарын CPT1 арқылы автоматты тасымалдамайды.
Әлі нені дәлелдеу керек
PQQ — құрылымы анықталған бактериялық редокс-кофактор әрі жасушалық биоэнергетиканы зерттеуге пайдалы тәжірибелік құрал. Митохондриялық биогенез гипотезасының ең мазмұнды механистік негізін CREB пен PGC-1α өшірілген Hepa1-6 жасушаларындағы өлшемдер береді; жүрек пен жүйке тінінің жануар модельдері доклиникалық сигналдар қосады, бірақ енгізу жолдары мен зақым контексттері өзгеше. Адам деректері әлі де аралық нәтижелерді өлшейтін шағын және бақылау деңгейі әркелкі жұмыстармен шектеледі. Келесі зерттеулер тінде өлшенген экспозицияны нысанамен байланыстырып, әсерді тәуелсіз факторлық дизайнда растауы және клиникалық мәні бар соңғы нүктелерді алдын ала белгілеуі керек. Оған дейін қарастырылған әдебиеттен «дәрумендік статус» та, инфаркт, деменция немесе диабетке арналған емдеу хаттамалары да шықпайды.
Бұл шолу қалай дайындалды
Бұл — 35 жарияланымнан жиналған әдебиеттер тобына негізделген PQQ туралы нарративті шолу. 2026 жылғы 4 қазандағы редакциялық нұсқада CREB–PGC-1α жасушалық осі, тәжірибелік кардиопротекция, токсикология және библиографиялық сәйкессіздіктер туралы жекелеген негізгі жұмыстар нысаналы түрде салыстырылды. Алдын ала белгіленген хаттама бойынша жүйелі іздеу, метаталдау және әр зерттеудің ығысу қаупін ресми бағалау жүргізілген жоқ; дереккөздер тізімін толық деп санауға болмайды.
Редокс-химия, жасуша желісіндегі ген экспрессиясының өзгеруі және жануарлар моделіндегі әсер клиникалық нәтижелерден бөлек қарастырылады. Жасуша дақылындағы концентрация мен жануарға берілген доза адамға тиімді режимді анықтамайды. Адамдардағы шағын әрі әркелкі зерттеулерді түсіндіргенде популяция, заттың химиялық түрі, ұзақтығы және соңғы нүктесі маңызды. Механизмдердің өзара үйлесуі ұзақ мерзімді клиникалық пайданы немесе тіндегі фармакокинетиканы дәлелдемейді.
Жиі қойылатын сұрақтар
PQQ адам үшін дәрумен бе?
PQQ бірқатар бактериялық ферменттерге кофактор екені расталған; адамдағы міндетті PQQ-тәуелді фермент пен тапшылық синдромы анықталмаған.
CREB пен PGC-1α туралы негізгі тәжірибе белгіленген экспозицияда тышқан бауыры жасушаларында жүргізілген. Әдеттегі ауыз арқылы қабылдаудан кейін адам тінінде салыстырмалы әсер көрсетілмеген.
Инфарктіден кейін PQQ қолдануға бола ма?
Парентералды енгізілген егеуқұйрықтарда зақым аймағының азаюы байқалған. Инфарктіден кейінгі клиникалық тиімділік пен емдік доза анықталмаған.
PQQ-дың есте сақтау мен ұйқыға әсері туралы не белгілі?
Тесттерді немесе өзіндік есептерді пайдаланған шағын әрі әртүрлі бақыланған зерттеулер бар. Олар деменцияның алдын алуды немесе ұйқының физиологиялық құрылымы өзгергенін дәлелдемейді.
Егеуқұйрықтағы NOAEL доза адамға қауіпсіз екенін білдіре ме?
Жоқ. Ол нақты химиялық түрге, жануар түріне және тәжірибе ұзақтығына қатысты; адам қауіпсіздігі мен нақты дозаны бөлек деректер анықтауы керек.
Дереккөздер
Hauge JG. Glucose dehydrogenase of Phopshobacterium fischeri: an enzyme containing a novel prosthetic group. J Biol Chem. 1964;239(11):3630-3639.
Murase K, Hattori A, Kohno M, Hayashi K. Stimulation of nerve growth factor synthesis/secretion in mouse astroglial cells by coenzymes. Biochem Mol Biol Int. 1993;30(4):615-621.
Nakano M, Ubukata K, Yamamoto T, Yamaguchi H. Effect of pyrroloquinoline quinone (PQQ) on mental status of middle-aged and elderly persons. FOOD Style 21. 2009;13(7):50-53.