
Pirrolokinolinxinon (PQQ): redoks kimyosi, CREB–PGC-1α va klinik dalillarning chegaralari
Bakterial xinon kofaktori va hujayradagi mitoxondrial biogenezdan yurak va miya modellariga, odamlardagi kichik tadqiqotlarga hamda toksikologik cheklovlargacha.
Pirolokinolinxinon (PQQ, metoksatin) bakterial enzimologiya va sutemizuvchilar eksperimental biologiyasi oralig‘ida o‘ziga xos o‘rin tutadi. U qator bakterial degidrogenazalar uchun haqiqiy redoks-kofaktor hisoblanadi; hujayra kulturasi va hayvonlarda PQQ ta’siri mitoxondriya faoliyati ko‘rsatkichlarini o‘zgartiradi. Biroq bu kuzatuvlar PQQ odam uchun tasdiqlangan vitamin, mitoxondriya ichidagi universal antioksidant yoki ishemiya, neyrodegeneratsiya va metabolik kasalliklarni davolashning isbotlangan vositasi ekanini anglatmaydi. Keyingi adabiyotlarni talqin qilishda kimyoviy imkoniyat, o‘lchangan hujayra javobi va klinik natijani farqlash muhim.
PQQ qanday kashf etildi va vitamin haqidagi bahs nega hanuz ochiq
PQQ tarixi faolligi odatiy NAD(P)- va flavinlarga bog‘liq sxemalar bilan tushuntirib bo‘lmaydigan bakterial degidrogenazalardan boshlandi. Metilotroflar xinoproteinlari bo‘yicha izlanishlar past molekulyar massali yangi kofaktorni ajratib olishga olib keldi; Salisbury va hamkasblarining strukturaviy ishi unga «metoksatin» nomini mustahkamladi. Metanol degidrogenazada kofaktor metall ioni ishtirokida oqsilning faol markazida ushlanadi va substratdan fiziologik akseptorga qaytaruvchi ekvivalentlarni uzatadi. Ferment bilan bog‘langan bu muhit kulturaga qo‘shilgan yoki og‘iz orqali qabul qilingan erkin PQQdan tubdan farq qiladi: konsentratsiya, redoks-hamkorlar va raqobatdosh reaksiyalar bir xil emas.
Kasahara va Katoning sutemizuvchilardagi lizin katabolizmi fermenti uchun PQQ kofaktor bo‘lishi mumkinligi haqidagi xabari «yangi vitamin» haqida bahs uyg‘otdi. Keyinchalik Felton va Anthony e’lon qilgan tanqidiy tahlil bunday kofaktorni aniqlashga shubha bildirdi. Mitoxondrial DNK miqdori va ayrim metabolik ko‘rsatkichlar o‘zgargan kemiruvchilar parhez tajribalari model parhez tarkibiga biologik jihatdan sezgir ekanini ko‘rsatadi, ammo o‘z-o‘zidan majburiy PQQga bog‘liq reaksiyani, tanqislik sindromini yoki odam uchun ehtiyoj me’yorini belgilamaydi. «B14 vitamini» norasmiy nom bo‘lib qolmoqda; «uzoq umr vitamini» gipotezasi esa ovqatlanishning uzoq muddatli ta’sirlarini o‘rganish uchun ramka, PQQ zarur modda deb e’tirof etish emas.
Bakteriyalar PQQ sintezlaydi, o‘simliklar va oziq-ovqat mahsulotlarida esa u oz miqdorda bo‘lishi mumkin. Sutemizuvchilarda ma’lum bakterial biosintez yo‘lining yo‘qligi PQQ oziq-ovqatdan tushish ehtimoliga zid emas, biroq mikrob PQQsi yadro va mitoxondriya o‘rtasidagi evolyutsion jihatdan mustahkamlangan signal ekanini isbotlamaydi. Bu jozibali gipotezani to‘qimalarda aynan shu moddaning mavjudligi, uni tanib olish va fiziologik javobning in vivo konsentratsiyaga bog‘liqligi haqidagi ma’lumotlar bilan tekshirish kerak.
Xinon karkasi va redoks dalilining chegaralari
PQQ molekulyar formulasi bo‘lib, erkin kislota uchun molyar massasi taxminan . Uning kondensatsiyalangan aromatik tizimida orto-xinon fragmenti va uchta karboksil guruhi bor. C4 va C5 holatlari xinonning ikki elektron bilan gidroxinon shakliga qaytarilishida qatnashadi; bir elektronli bosqichda semixinon oraliq mahsuloti hosil bo‘ladi. Protonlangan va deprotonlangan shakllarning aniq nisbati pH va muhitga bog‘liq, dinatriy tuzi esa massa va eruvchanligi bo‘yicha erkin kislotadan farq qiladi. Shu bois kimyoviy shakl ko‘rsatilmay turib strukturaviy formula, tahliliy konsentratsiya va qo‘shimcha massasini aralashtirmaslik kerak.
Elektron donori va akseptori mavjud bo‘lsa, oksidlangan va qaytarilgan shakllar qayta-qayta bir-biriga o‘tishi mumkin. Ammo sikllar soni aniq reagentlar va kuzatuv muddati bilan belgilangan tajribaning xususiyati, to‘qimadagi molekulaning o‘zgarmas «sig‘imi» emas. Dastlabki «PQQ 20 000 sikl, C va E vitaminlari esa bir necha sikl» qiyosi bir xil sharoitlarni belgilamaydi va Pazning keltirilgan ishi bilan universal biologik konstanta sifatida tasdiqlanmagan. Askorbat va tokoferol ham bog‘langan hujayra tizimlari orqali qayta tiklanadi, shuning uchun ularni bunday jadval asosida tartiblash ilmiy jihatdan noto‘g‘ri.
Xinon kimyosi erkin radikallarni shartsiz yutish bilan bir xil emas. Turli sharoitlarda PQQ, aminokislotalar, oqsillar va kislorod orasidagi elektron almashinuvi oksidlovchini qaytarish bilan ham, faol kislorod shakllarini hosil qilish bilan ham birga kechishi mumkin. Hujayradagi reaksiyada reagentlar konsentratsiyasi, raqobat qiluvchi ferment yo‘llarining tezligi, joylashuvi, qaytaruvchining mavjudligi va metall katalizlaydigan yon jarayonlar muhim. Shu sabab superoksid, gidroksil radikali va peroksinitritni bevosita «tutib qolish» formulalarini og‘iz orqali qabul qilingan PQQ kerakli mitoxondrial mikrodomainga yetib borib, u yerda superoksiddismutaza yoki peroksiredoksinlardan ustun kelishining isboti deb qabul qilmaslik lozim.
Uch karboksil guruhi molekulaning qutbliligini oshiradi va kislota-asos holatini eruvchanlik, oqsillarga bog‘lanish hamda membranadan o‘tish uchun muhim qiladi. Neytralga yaqin pHda ionlashgan shakllar ustun bo‘lsa ham, aynan shu muhitda o‘lchangan qiymatlarisiz har bir mikrotur ulushini chiqarib bo‘lmaydi; dastlabki , va qiymatlarni sitozol konstantalari deb avtomatik qabul qilmaslik kerak. Xinon potensiali ham protonlanishga bog‘liq: Nernst tenglamasi kuzatiladigan potensialni oksidlangan va qaytarilgan shakllar hamda faolligi bilan bog‘laydi, barcha kompartamentlar uchun yagona universal belgilamaydi. Bu fizik kimyo ehtimoliy prooksidant reaksiyani talqin qilishda ayniqsa muhim: erkin xinon, bog‘langan kofaktor va aminokislota bilan murakkab adduktda elektronlar mavjudligi farq qiladi.
Xinoprotein degidrogenazada oqsil substrat, PQQ va metall ionini mos holatga keltiradi, so‘ng elektronlarni belgilangan fiziologik yo‘l bo‘ylab uzatadi. Erkin PQQda bunday katalitik karkas yo‘q. Demak, «psevdoferment» atamasi eritmadagi reaksiyaga faqat o‘xshatish bo‘lib, yangi inson fermentini aniqlash emas. Radikal bilan elementar reaksiyaning tezlik konstantasi yuqori bo‘lsa ham, uning hujayra oqimiga hissasi shu hajmdagi SOD, katalaza, peroksiredoksinlar va glutation tizimining raqobatdosh reaksiyalariga nisbatan ko‘paytmasiga bog‘liq.
| Kuzatuv darajasi | Nimani xulosa qilish mumkin | Nimani xulosa qilib bo‘lmaydi |
|---|---|---|
| Bakterial xinoprotein | Oqsilga bog‘langan PQQ elektronlarni katalitik uzatishda qatnashadi. | Erkin PQQ inson mitoxondriyasida xuddi shu siklni bajaradi. |
| Eritmadagi reaksiya | Xinon, semixinon va xinol shakllari bo‘lishi mumkin; tezlik muhitga bog‘liq. | Eritmadagi konstanta og‘iz orqali qabul qilingandan keyin to‘qima himoyasini ta’riflaydi. |
| Hujayra kulturasi | Ekspozitsiya ROS, nafas olish va gen ekspressiyasini o‘zgartirishi mumkin. | O‘lchangan o‘zgarish odamlarda kasallikning oldini olishni isbotlaydi. |
Hujayra signali: CREB, PGC-1α va mitoxondrial genom
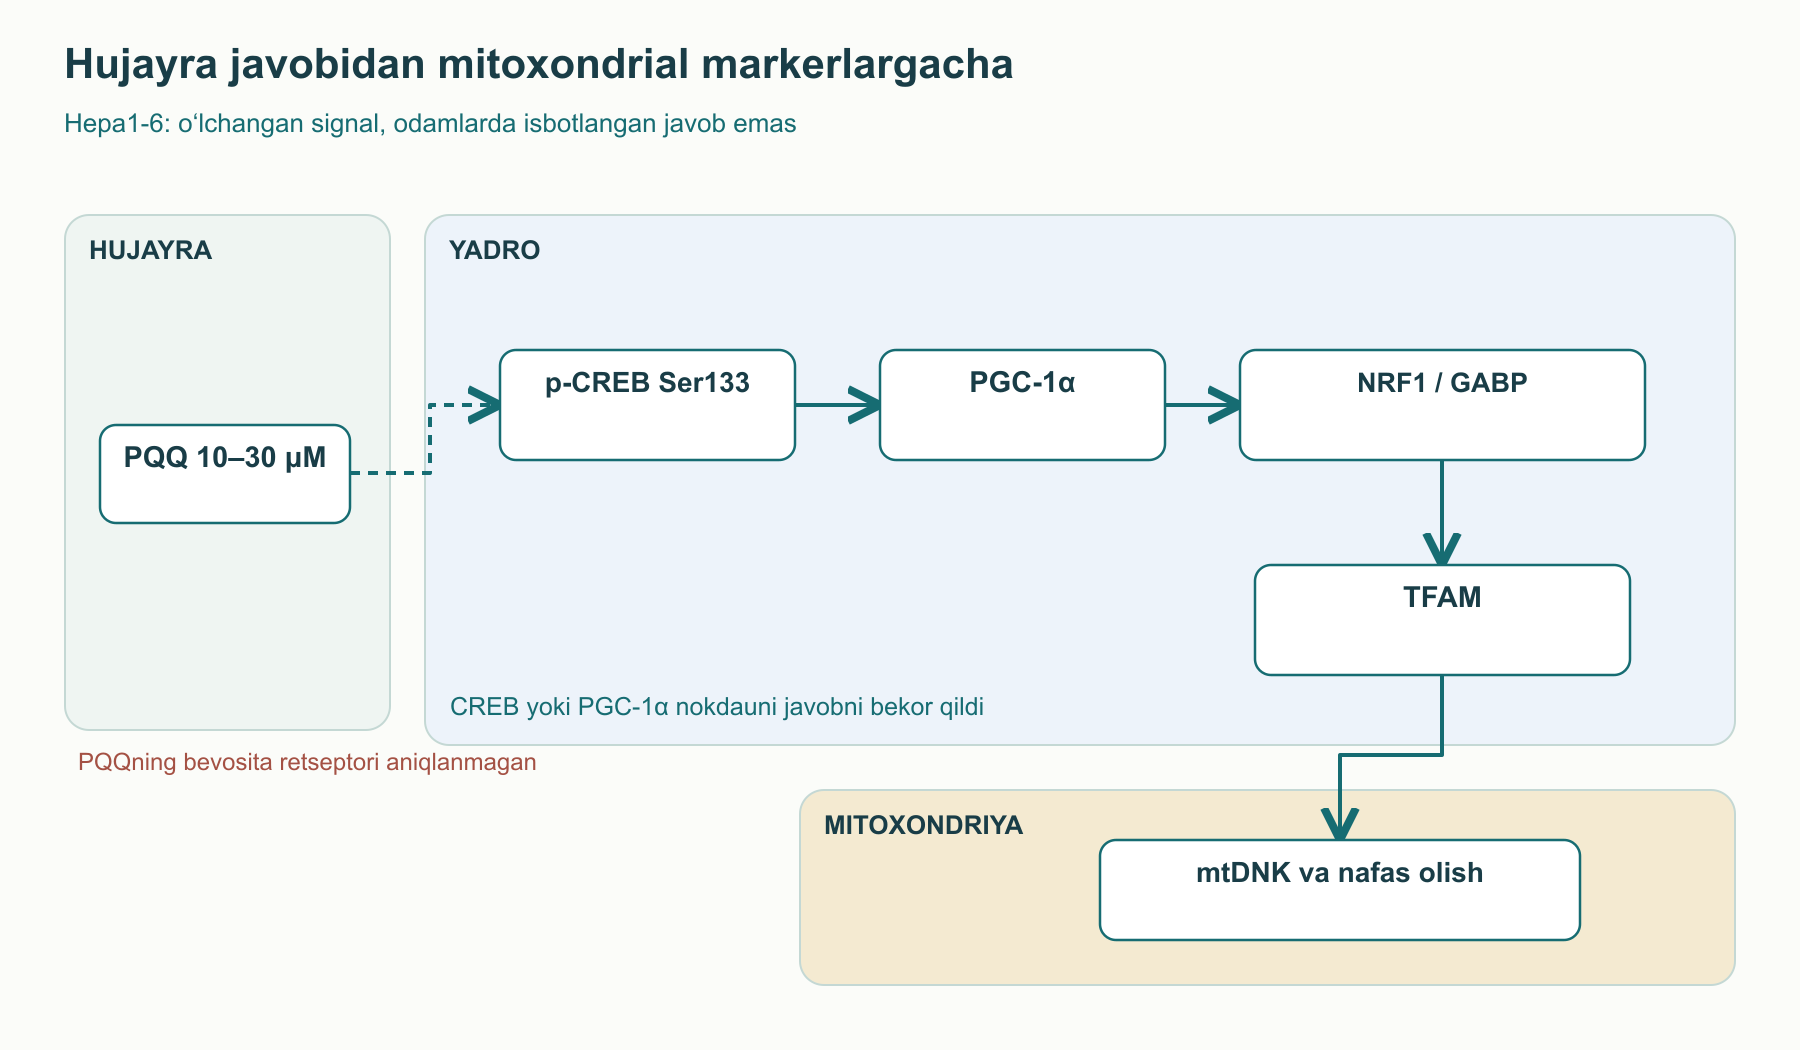
Chowanadisai va hamkasblarining asosiy tajribasi asosan sichqon jigarining Hepa1-6 hujayralarida o‘tkazilgan: PQQ – konsentratsiyada – soat ta’sir qilganda sitrat-sintaza va sitoxrom-c-oksidaza faolligi, Mitotracker bo‘yalishi, mitoxondrial DNKning yadro DNKsiga nisbati va kislorod sarfi ortgan. Mualliflar CREBning Ser133 bo‘yicha fosforlanishini, Ppargc1a promotorining faollashishini hamda PGC-1α mRNKsi va oqsili ko‘payishini kuzatgan. CREB yoki PGC-1αni siRNA bilan nokdaun qilish mitoxondrial markerlar induksiyasini bekor qilgan; bu oddiy korrelatsiyadan ancha kuchli dalil: ushbu modelda PQQ javobi uchun ikkala bo‘g‘in ham zarur. Biroq tajriba odatiy og‘iz dozasidan keyin odam gepatotsitlarida shunga o‘xshash ekspozitsiya yuz berishini ko‘rsatmaydi.
CREB — Ser133 bo‘yicha fosforlangach ayrim promotor kontekstlarida CBP/p300 koaktivatorlarini jalb qila oladigan transkripsion omil. Kanonik cAMP–PKA–CREB sxemasi signalning yuqori qismini tushunishga yordam beradi, ammo fosforlangan CREBni kuzatish PQQ adenilat-siklaza yoki muayyan G-oqsil subbirligiga bevosita bog‘lanishini yoxud barcha oraliq bosqichlar shartligini o‘z-o‘zidan isbotlamaydi. Ushbu modelda «CREB faollashdi» degan kuzatuvni PQQning aniqlangan molekulyar retseptori bilan tenglashtirib bo‘lmaydi. Fosforlanish reaksiyasida PKA ATPdan foydalanib fosfat guruhini oqsilga ko‘chiradi, PQQ esa reaksiya substrati emas:
Vaqt ketma-ketligi ham muhim: transkripsion omil fosforlanishidagi erta o‘zgarish, Ppargc1a mRNKsining keyingi o‘zgarishi, oqsil ko‘payishi va bir kundan keyingi mitoxondriya miqdori markerlari sababiy zanjirning turli bosqichlarini ifodalaydi. Agar faqat 24–48 soatlik yakuniy markerlar o‘lchangan bo‘lsa, cAMP yoki adenilat-siklaza faolligining daqiqalar miqyosidagi aniq kinetikasini tiklab bo‘lmaydi. Bevosita yo‘lni aniqlash uchun selektiv ingibitorlar yoki taklif qilingan kinazani genetik o‘chirish, ikkilamchi xabarchini miqdoriy o‘lchash va nospetsifik hujayra stressini nazorat qilish kerak. Dastlabki matnda cAMP 10–15 daqiqada ko‘tarilishi tasdiqlangan faktdek berilgan, biroq keltirilgan Chowanadisai abstrakti CREB Ser133 va unga bog‘liqlikni tasdiqlaydi, bu vaqt ketma-ketligini emas.
PPARGC1A mahsuloti PGC-1α DNK bilan o‘zi bog‘lanmaydi. U yadro transkripsion omillarini, jumladan NRF1, GABP/NRF2, ERR va PPARni koaktivatsiya qiladi; hamkorlar majmuasi to‘qima va metabolik holatga qarab o‘zgaradi. Tarixan «yadro respirator omili 2» deb atalgan GABPni antioksidant javob omili NFE2L2/NRF2dan farqlash zarur: bir xil «NRF2» qisqartmasi turli oqsillarni bildiradi. Hujayra tajribasida PQQ NRF1 va GABP faolligini, shuningdek Tfam, Tfb1m va Tfb2m ekspressiyasini oshirgan; bu yadro transkripsiyasi bilan mitoxondrial javob aloqasini qo‘llab-quvvatlaydi, ammo nafas olish zanjirining har bir oqsil subbirligi ortgani o‘lchangan degani emas.
TFAM prekursor oqsili sitozol ribosomalarida hosil bo‘ladi, TOM va TIM komplekslari orqali ichki kompartamentlarga yo‘naltiriladi va qayta ishlangach matriksda ishlaydi. U mtDNKni nukleoidlarga joylaydi hamda mitoxondrial RNK-polimeraza POLRMT va TFB omillari bilan birga transkripsiya boshlanishida qatnashadi. Inson mitoxondrial genomi oksidlovchi fosforlanishning 13 polipeptidini kodlaydi: I-kompleksning yetti ND subbirligi, III-kompleks sitoxrom b, IV-kompleksning uchta COX subbirligi va V-kompleks ATP6/ATP8; II-kompleks to‘liq yadro genomi tomonidan kodlanadi. Tfam ekspressiyasi va mtDNK/yadro DNKsi nisbati ortishi barcha 13 mahsulot avtomatik ko‘payganini, komplekslar to‘g‘ri yig‘ilganini yoki har kislorod molekulasiga ATP chiqishi ortganini isbotlamaydi.
Import va yig‘ilish ketma-ketligini kompartamentlar bo‘yicha ajratish kerak. Yadroda kodlangan TFAM tashqi membranadan TOM kompleksi, ichki membranadan esa import mexanizmi orqali o‘tadi; keyin matriksda uning signal peptidi kesiladi va TFAM mitoxondrial DNK bilan o‘zaro ta’sirlashadi. Mitoxondrial LSP va HSP promotorlari politsistron prekursorlar transkripsiyasini ta’minlaydi; ular keyin qayta ishlanib, mitoxondrial ribosomalarda tarjima qilinadi. Funksional komplekslar uchun qo‘shimcha ravishda o‘nlab yadroda kodlangan subbirliklar, ularning importi, yig‘ilish omillari, temir-oltingugurt markazlari, gem guruhlari va mos lipid muhit zarur. Shuning uchun TFAM va mitoxondrial DNK o‘lchovlari biogenez dalilining muhim, ammo to‘liq bo‘lmagan qismidir.
Kristalar shakli, kardiolipin miqdori, MICOS, MFN1/MFN2/OPA1 orqali qo‘shilish va DRP1 orqali bo‘linish muvozanati hamda PINK1/Parkin ga bog‘liq mitofagiya mitoxondrial tarmoq sifatiga ta’sir qilishi mumkin. Biroq bu tuzilmalarning umumiy fiziologik ahamiyati aynan Chowanadisai tajribasida PQQ ularning har birini o‘zgartirganini bevosita isbotlamaydi. «Biogenez»ni tajribada o‘lchangan belgilar — ferment faolligi, bo‘yalish, mtDNK va nafas olish — orqali tasvirlash kerak; alohida marker funksional organellalarning to‘liq yig‘ilishini o‘lchamaydi.
Nafas olish zanjiri, membrana potensiali va o‘tkazuvchanlik o‘tishi
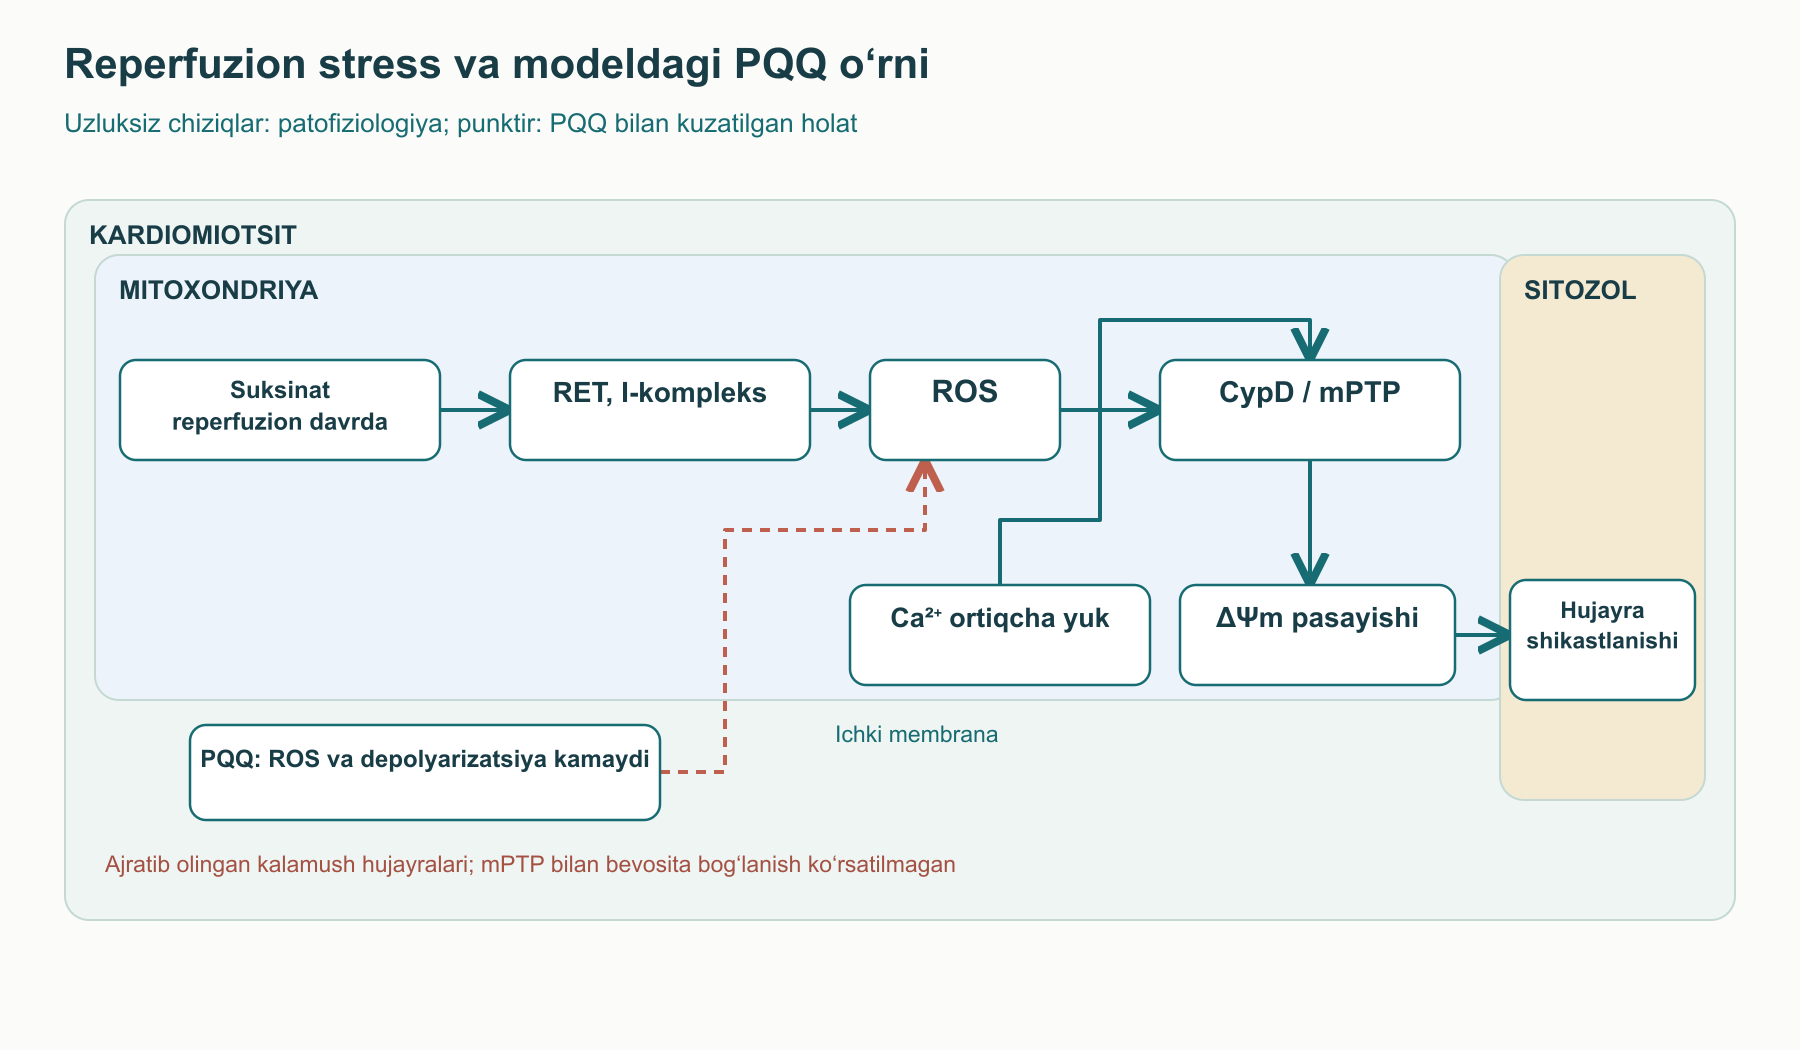
NADH va FADH₂ elektronlari nafas olish zanjiriga I va II komplekslar orqali kirib, keyin ubixinon, III-kompleks, sitoxrom c va IV-kompleks orqali kislorodga uzatiladi. I, III va IV komplekslar ATP-sintaza ADPni fosforlashda foydalanadigan protonlarning elektrokimyoviy gradientini hosil qiladi. Ayrim sharoitlarda qaytarilgan oraliq tashuvchilar elektronni kislorodga uzatib superoksid hosil qiladi; bunday «sizib chiqish» joyi va tezligi substratlar, membrana potensiali, kislorod rejimi hamda elektron oqimi yo‘nalishiga bog‘liq. Kislorodning «0,2–2 foizi» degan universal ulush barcha to‘qima va holatlarni ta’riflamaydi. Reperfuzion davrda suksinat to‘planishi fonidagi yuqori potensial elektronlarning I-kompleksga teskari tashilishi va ROSning qisqa keskin ortishiga yordam berishi mumkin. Bu reperfuziya modeliga xos mexanizm, har bir hujayra qarishining muqarrar ta’siri emas.
Proton-harakatlantiruvchi kuch elektr va kimyoviy tarkiblarni birlashtiradi: gradient yo‘nalishi va harorat ko‘rsatilgan holda . pH birligiga taxminan qiymati faqat ma’lum haroratda kelib chiqadi, shuning uchun uni shartsiz konstanta sifatida ishlatmaslik kerak. Uzoq davom etgan kislorod tanqisligi, kalsiy ortiqcha yuklanishi va lipidlarning oksidlanishi bog‘lanishni buzib, ni kamaytirishi va ATP-sintazani teskari yo‘nalishda ishlashga majbur qilishi mumkin. Biroq mitoxondrial markerlar ko‘proq bo‘lishi samaraliroq bog‘lanish yoki kamroq ROS hosil bo‘lishini kafolatlamaydi.
Mitoxondrial o‘tkazuvchanlik o‘tishi (mPTP) — kalsiy va redoks holatiga sezgir ichki membrana o‘tkazuvchanligining ortishi bo‘lib, matriks shishishi, yo‘qolishi va og‘ir zararlanishda tashqi membrana yorilishiga olib keladi. Siklofilin D (PPIF) o‘tish ehtimolini tartibga soladi; ANT va ATP-sintaza tarkibiy qismlarining ishtiroki muhokamada, «VDAC–ANT–CypD — isbotlangan yagona kanal» sxemasi esa ortiqcha qat’iy. Sitoxrom c sitozolga chiqqach APAF1, dATP/ATP va prokaspaza-9 bilan apoptosoma yig‘ilishi mumkin; kuchli energetik kollapsda esa nekrotik shikastlanish ustun keladi. Natija stress kuchi va qolgan ATPga bog‘liq.
Ajratib olingan kardiomiotsitlarda Tao va hamkasblari PQQ bilan oldindan ishlov berish keltirib chiqargan ROS signali va depolyarizatsiyani kamaytirganini ko‘rsatdi; qiyosiy tajribada siklosporin A ham potensial yo‘qolishining oldini olgan. Natija o‘tkazuvchanlik o‘tishiga aloqador jarayonlarga ta’sir bilan mos keladi, ammo PQQ siklofilin D bilan bevosita bog‘lanishi, ANTning muayyan tiollarini saqlashi, NCLXni me’yorlashtirishi yoki odamda «teshikni to‘sishi»ni isbotlamaydi. Dastlabki matndagi kalsiy orqali ochilish chegarasining uch-to‘rt baravar siljishi keltirilgan birlamchi tajribada tasdiqlanmagan va chiqarib tashlangan. Kardiolipin va ichki membranalar tutashuvi strukturaviy jihatdan ham muhim, biroq ularning patofiziologiyadagi rolini alohida tajribasiz PQQning o‘lchangan ta’siri deb bo‘lmaydi.
SIRT1 asosan yadro va sitozolda, SIRT3 esa mitoxondriya matriksida ishlaydi. Ularning deatsetilaza reaksiyalari ga bog‘liq bo‘lib, nikotinamid va O-atsetil-ADP-riboza hosil qiladi; SIRT1 PGC-1α atsetillanishini, SIRT3 esa SOD2 va IDH2 kabi ayrim mitoxondrial fermentlarni o‘zgartirishi mumkin. Huangning HepG2 hujayralarida o‘tkazgan ishida PQQdan keyin SIRT1/SIRT3 ekspressiyasi va faolligi o‘zgargani xabar qilingan. Ushbu modeldagi sirtuin o‘lchovlari PQQ odamlarda mavjudligini oshirishi, sanab o‘tilgan har bir oqsilni bevosita deatsetillashi yoki butun nafas olish zanjirini yagona majburiy mexanizm bilan kuchaytirishini isbotlamaydi. Sababiy xulosa uchun muayyan substratlarning atsetillanishi va oqimlarini mustaqil o‘lchash hamda tegishli bo‘g‘inni genetik o‘chirish kerak.
apigenin kontekstida CD38 va NAD⁺ haqidagi alohida tahlil NAD⁺ miqdori, sirtuin faolligi va klinik ta’sirni farqlashga yordam beradi: biokimyoviy atamalarning o‘xshashligi ikki qo‘shimchani o‘zaro almashtirmaydi.
Yurak: ishemiya, reperfuziya va klinikagacha bo‘lgan himoyaning chegaralari
Koronar ishemiya paytida oksidlovchi fosforlanish susayadi, laktat va protonlar to‘planadi, ATP va fosfokreatin zaxirasi kamayadi. Na⁺/K⁺-ATFaza, SERCA va ion almashgichlar faoliyatining buzilishi sitozol hamda mitoxondriyada kalsiy ortiqcha yuklanishiga yordam beradi. Reperfuziya kislorodni qaytarib, pHni me’yorlashtiradi, biroq suksinatning ortiqligi va elektron uzatish zanjirining buzilishi keskin redoks siljishini yuzaga keltirishi mumkin; kalsiy bilan birga bu o‘tkazuvchanlik o‘tishini osonlashtiradi. Sxema tajribada nishonlar nima uchun tanlanishini tushuntiradi, ammo har qanday antioksidantni miokard infarktiga samarali davoga aylantirmaydi.
Zhu va hamkasblari chap oldingi pastga tushuvchi koronar arteriyani bog‘lagandan keyin kalamushlarni o‘rgangan. Bir modelda reperfuziyasiz ikki soat ishemiya, ikkinchisida 17 yoki 30 daqiqalik okklyuziya va undan keyin ikki soat reperfuziya qo‘llangan. PQQ okklyuziyadan oldin qorin bo‘shlig‘iga, yoki reperfuziya boshida vena ichiga yuborilgan; odatiy oziq-ovqat dozasi sifatida og‘iz orqali berilmagan. Shu sharoitlarda mualliflar infarkt maydoni kichraygani va dastlabki bosim ko‘rsatkichlari yaxshilanganini xabar qilgan. Reperfuziya modelida oldindan yuborish va reperfuziya paytida yuborish guruhlaridagi nashr etilgan nisbatlar mos ravishda 18,4 ± 2,3% va 25,6 ± 3,5%, nazoratda esa 38,1 ± 2,6% bo‘lgan. Bu raqamlar mualliflarning protokoli va normallashtirish usuliga tegishli; dastlabki 55,4 → 26,1% qiymatlar abstraktga mos kelmaydi. Natijalar o‘lim kamayishini, uzoq muddatli ejeksiya fraksiyasi yaxshilanishini yoki klinik reperfuziya davosiga tenglikni isbotlamaydi.
Tao tajribasida katta yoshli kalamushdan ajratilgan kardiomiotsitlar PQQ bilan oldindan inkubatsiya qilingach ta’siriga uchratilgan. ROS, hujayra yashovchanligi va o‘lchovlari hujayra himoyasi bilan mos keladigan yaxlit signal bergan; biroq idishdagi o‘tkir toksik stress infarktning tomir, immun va gemodinamik tarkibiy qismlarini takrorlamaydi. Kalamushlarda metoprolol bilan alohida taqqoslash klinik ustunlik isboti sifatida talqin qilinmaydi: aralashuvlar doza, yuborish yo‘li va mexanizmi bo‘yicha farq qiladi. Dastlabki matndagi LVEFning oylar davomida saqlanishi, infarktdan keyingi qayta tuzilish va LVEDPning aniq diapazonlari keltirilgan qisqa tajribalar bilan tasdiqlanmagan va bu yerda belgilangan fakt sifatida takrorlanmaydi.
Nerv to‘qimasi: trofik signallar, toksin modellari va oqsil agregatlari
Murase va Yamaguchining dastlabki ishlarida PQQ va uning hosilalari ta’sir qilgan astrogliya yoki boshqa tajribaviy tizimlarda nerv o‘sish omili (NGF) ishlab chiqarilishi o‘rganilgan. NGF TrkA va p75NTR orqali ta’sir qiladi, BDNF esa asosan TrkB bilan bog‘liq; keyingi bosqichlarda hujayra yashovchanligi va plastiklikka aloqador PI3K–Akt hamda MAPK–ERK kaskadlari qatnashishi mumkin. Ammo hujayrada NGF javobi kuzatilgani inson miyasida NGF/BDNF ortgani, bazal old miya xolinergik neyronlari tiklangani yoki polineyropatiya davolanishiga teng emas. BDNF uchun model va konsentratsiya sharoiti ayniqsa muhim: NGF ishlaridagi ta’sirni unga avtomatik ko‘chirib bo‘lmaydi.
6-gidroksidofamin katexolaminergik hujayralarni oksidlovchi reaksiyalar va xinonoid mahsulotlar orqali shikastlaydi, rotenon esa I-kompleksni ingibitsiya qilib energiya va redoks stressini qo‘zg‘atadi. Hara, Qin va Martin ishlarida hujayra kulturasi hamda toksin modellarida PQQning neyrohimoya signallari, jumladan ROS, yashovchanlik va hayvonlarning harakat ko‘rsatkichlari tasvirlangan. Toksin modellari Parkinson kasalligi mexanizmlarini tahlil qilishga yordam beradi, ammo insondagi surunkali patologiyani to‘liq takrorlamaydi; ulardagi natijani bemorlarda substantia nigra neyronlari saqlanib qoladi degan va’daga aylantirib bo‘lmaydi. DJ-1 bilan bevosita bog‘lanish, tirozin-gidroksilaza tiklanishi va muayyan xulq natijalarini bitta universal zanjirga qo‘shmasdan, alohida tajribalarga bog‘lash lozim.
Rekombinant α-sinukleinda Kobayashi va hamkasblari PQQ qo‘shilishi fibrillalar hosil bo‘lishini susaytirganini kuzatgan; Kim va hamkasblari Aβ kabi amiloid hosil qiluvchi oqsillarni in vitro o‘rgangan. Tioflavin fluoressensiyasi, elektron mikroskopiya va strukturaviy usullar probirkadagi agregatsiyani ta’riflaydi, ammo yetilgan fibrillalar signalining pasayishi zaharli eruvchan oligomerlar qolmasligini, undan ham kamroq mikroglia ularni tozalashini kafolatlamaydi. Shu bois Aβ Lys16/Lys28 qoldiqlarini kovalent himoyalash, mavjud blyashkalarni to‘liq depolimerlash yoki Altsgeymer kasalligiga terapevtik ta’sir haqidagi da’volar boshqa dalillarni talab qiladi. Zhang hujayra modelida Aβ toksikligi susayganini xabar qilgan, lekin bu inson miyasida zarur erkin PQQ konsentratsiyasini belgilamaydi.
Aizenman va hamkasblari PQQ bilan NMDA-retseptor javobining redoks orqali modulyatsiyalanadigan qismi o‘rtasidagi o‘zaro ta’sirni ko‘rsatgan. Retseptordagi sistein qoldiqlari kanalning redoks muhitiga sezgirligini o‘zgartiradi; glutamat eksitotoksikligida Ca²⁺ haddan tashqari kirishi kalpainlar, fosfolipazalar va NO-sintazani faollashtiradi. Bu ehtimolga mos tajribaviy kontekst, ammo dastlabki matnda taklif qilingan muayyan sistein juftining bitta PQQ molekulasi bilan bevosita oksidlanish aniq stexiometriyasini, fiziologik plastiklikka nisbatan xavfsiz tanlovchanlikni yoki insultdagi samarani tasdiqlamaydi.
Metabolizm va yallig‘lanish: mexanizm bilan natijani ajratamiz
AMPK hujayraning energetik holatiga javob beradi va ACCni fosforlash orqali malonil-KoA hosil bo‘lishini kamaytiradi; malonil-KoA CPT1ni tormozlab, uzun zanjirli atsillarning mitoxondrial β-oksidlanishga kirishini tartibga soladi. Mushakda AMPKga bog‘liq signal TBC1D4/AS160 va Rab oqsillarini boshqarish orqali GLUT4 translokatsiyasiga yordam berishi mumkin. O‘z navbatida PGC-1α PPAR va boshqa omillar orqali oksidlovchi metabolizm dasturlarini koaktivatsiya qiladi. Bu fiziologik tarmoq PQQ ishlarida qaysi natijalarni o‘lchash kerakligini tushuntiradi, ammo PQQ AMPKni Thr172 bo‘yicha bevosita faollashtiradi, diabetli odamlarda IRS1 sezgirligini tiklaydi yoki klinik glyukoza utilizatsiyasini oshiradi degan xulosani o‘z-o‘zidan bermaydi. Bunday da’volar uchun to‘qimadagi oqimlar, metabolik sinamalar va insonlardagi nazoratli tadqiqotlar kerak.
Yog‘ kislotalarining mitoxondriyaga kirish enzimologiyasi karnitin-palmitoiltransferaza CPT1 haqidagi alohida materialda tahlil qilingan. Uning mexanizmi PQQ gipotezasi uchun aniq chegarani ko‘rsatadi: transkripsion gipoteza atsillar transporti va β-oksidlanish tezligini o‘lchash o‘rnini bosmaydi.
Mitoxondrial stress ROS, mtDNK ajralishi, NF-κB va NLRP3 inflamasomasi orqali yallig‘lanishni davom ettirishi mumkin. NLRP3 faollashuvi kaspaza-1 yetilishi va IL-1β/IL-18 qayta ishlanishiga yordam beradi; IκBα–NF-κB signalini susaytirish nazariy jihatdan ko‘plab yallig‘lanish genlari ekspressiyasini o‘zgartirishi mumkin. Biroq tegishli to‘qima ma’lumotlarisiz sog‘lom ishtirokchilardagi zardob CRP yoki IL-6 o‘zgarishini ularning mikroglialarida NLRP3 bevosita susaygani bilan izohlab bo‘lmaydi. Inflammaging yoshga aloqador keng hodisani ta’riflaydi, PQQ uchun belgilangan ko‘rsatma emas.
Odamlar ishtirokidagi tadqiqotlar nimani ko‘rsatadi
PQQ bo‘yicha klinik dalillar to‘plami klinikagacha bo‘lgan modellar majmuasidan ancha kichik va tadqiqot dizaynlari xilma-xil. Dastlabki matnda sanalgan barcha nashrlarni randomizatsiyalangan ikki tomonlama ko‘r sinov deb bo‘lmaydi: ayrim ishlar kichik, ayrimlari ochiq dizaynda, ba’zilari esa moddalar kombinatsiyasidan foydalanadi. Ularning yakuniy nuqtalari — biomarkerlar, kognitiv test natijalari va ishtirokchilarning o‘z hisobotlari; infarkt, demensiya rivojlanishi yoki o‘limning oldini olish emas. Natijalarni talqin qilishda PQQ ekspozitsiyasi, mahsulot shakli, nazorat guruhi va o‘rganilgan populyatsiyani alohida hisobga olish kerak.
Harris va hamkasblari PQQni bir marta va qisqa muddat takroran qabul qilgan sog‘lom ko‘ngillilarning kichik guruhini o‘rgangan; metabolomik va yallig‘lanish markerlari bo‘yicha ish izlanish xarakterida bo‘lgan. Ayrim yallig‘lanish ko‘rsatkichlari va siydik metabolitlaridagi o‘zgarishlar xabar qilingan, biroq yetarli nazorat qilingan klinik yakuniy nuqta yo‘qligi surunkali yallig‘lanishni davolash haqida xulosa qilishga imkon bermaydi. Organik kislotalarning chiqarilishi o‘zgarishi mushakda mitoxondrial bog‘lanish samaradorligi yoki ATP sintezini bevosita o‘lchash bilan teng emas. Dastlabki matnda ushbu ishning identifikatori noto‘g‘ri: to‘g‘ri PMID — 24231099, DOI 10.1016/j.jnutbio.2013.07.008. Shu sabab protokol va nazorat taqqoslashida tasdiqlanmagan «76 soatda hs-CRP 45% kamaydi» degan aniq da’vo takrorlanuvchi klinik ta’sir sifatida keltirilmaydi.
Itoh va hamkasblari nashrida 41 nafar sog‘lom yoshi katta ishtirokchi PQQ dinatriy tuzi bo‘yicha randomizatsiyalangan, ikki tomonlama ko‘r, platsebo nazoratli sinovga kiritilgan. Bunday tanlanmadagi ayrim kognitiv ko‘rsatkichlar o‘zgarishi gipoteza uyg‘otadi, biroq ko‘p testlar, boshlang‘ich qiymatlar, ta’sir kattaligi va mustaqil guruhda takrorlanishga e’tibor zarur. Qisqa birlamchi abstrakt dastlabki matndagi prefrontal korteks gemodinamikasi va aniq «Stroop yaxshilanishi» haqidagi barcha tafsilotlarni tasdiqlamaydi; yaqin NIRS tajribalarini ushbu sinovga avtomatik qo‘shib bo‘lmaydi. Nakano va hamkasblarining 2009-yildagi PQQ va CoQ10 nashri alohida ko‘rib chiqiladi: guruh moddalar kombinatsiyasini qabul qilsa, uni faqat platsebo bilan solishtirish har bir moddaning hissasi yoki o‘zaro ta’sirini aniqlamaydi. Demak, «2,2 baravar sinergiya» bitta PQQning ishonchli aniqlangan ta’siri emas.
Nakano va hamkasblari PQQni sakkiz hafta qabul qilgan 17 nafar katta yoshli ishtirokchini ham kuzatib, uyqu, charchoq va kayfiyatning subyektiv shkalaridagi o‘zgarishlarni tasvirlagan. Bu ish nazoratli sinovni rejalashtirish uchun signal bo‘lishi mumkin, ammo ochiq dizayn va o‘z-o‘zini hisobot qilish ishtirokchilarning kutishlari hamda vaqt o‘tishi bilan holat o‘zgarishiga sezgir. Pitsburg uyqu sifati indeksi (PSQI) subyektiv sifatni baholaydi, polisomnografik bosqichlar tuzilishini emas; undan «uyqu chuqurlashdi» yoki sirkadiyal ritm me’yorlashdi degan xulosa chiqarib bo‘lmaydi. Dastlabki matndagi PSQI, uyqu latentligining, LF/HF va kortizolning aniq qiymatlari maqola jadvallari bilan solishtirilishi kerak, shu bois bu yerda tasdiqlangan natijalar sifatida takrorlanmaydi.
| Birlamchi ish | Dizayn va o‘lchangan natija | Joiz xulosa |
|---|---|---|
| Harris 2013 | Sog‘lom ko‘ngillilarning kichik, qisqa muddatli guruhi; yallig‘lanish va siydik metabolomik ko‘rsatkichlari. | Biomarker signali bo‘lishi mumkin; klinik foyda aniqlanmagan. |
| Itoh 2016 | 41 nafar sog‘lom yoshi katta ishtirokchi, randomizatsiyalangan platsebo nazoratli sinov; kognitiv testlar. | Mustaqil takrorlash va ko‘p taqqoslashlarni baholash zarur. |
| Nakano 2012 | 17 nafar katta yoshli ishtirokchi, sakkiz hafta, ishonchli platsebo nazoratisiz subyektiv shkalalar. | Uyquning fiziologik tuzilishi o‘zgardi deb bo‘lmaydi. |
Bu materialni melatoninning mitoxondrial va sirkadiyal mexanizmlari bilan qiyoslash yakuniy nuqtalar farqini ko‘rsatgani uchun foydali: «mitoxondriya» va «uyqu» kabi o‘xshash atamalar umumiy isbotlangan terapevtik ta’sir borligini anglatmaydi.
Biosintez, kimyoviy shakl va farmakokinetik noaniqlik
PQQning bakterial biosintez yo‘li Glu va Tyr qoldiqlarini o‘z ichiga olgan qisqa PqqA peptididan boshlanadi. PqqD oqsili ushbu prekursorni radical-SAM oilasiga mansub PqqE fermentiga taqdim etadi; qoldiqlar orasida C–C bog‘ hosil bo‘lishi kelajakdagi xinon karkasining asosini yaratadi. Keyingi o‘zgarishlarda PqqB va PqqC qatnashadi, oxirgi bosqich esa yetilgan kofaktorning oksidlovchi shakllanishi bilan bog‘liq. Gen klasterlarining tarkibi va tashkil topishi bakteriyalar orasida farq qiladi; «pqqA–E» qisqartmasi asosiy sxemani bildiradi, yagona sanoat shtammi yoki barcha yordamchi genlarning to‘liq ro‘yxatini emas. Ishlab chiqarishda fermentatsiya, tozalash va dinatriy tuziga o‘tkazish mumkin, ammo dastlabki matndagi kimyoviy sintezning aniq chiqimlari, erituvchilar tarkibi, doimiy >99% tozalik va bitta texnologiyaning eksklyuziv «oltin standarti» kabi da’volar biokimyoviy manbalarda tasdiqlanmagan.
Erkin kislota va dinatriy tuzi farqi doza massasini hisoblash, eruvchanlikni baholash va tahlillarni qiyoslash uchun muhim. Oziq-ovqat xavfsizligi bahosi aniq ingredient, ishlab chiqarish usuli, spetsifikatsiya va mo‘ljallangan iste’mol darajasiga taalluqli; bu PQQ yurak yoki nevrologik kasalliklar uchun dori sifatida ma’qullanganini anglatmaydi. Oziq-ovqat tarkibida PQQ oz miqdorda uchraydi, biroq past konsentratsiya, oqsil adduktlari va namuna tayyorlash sharoitlari tahlilni qiyinlashtiradi. Odamlarda turli shakllar uchun so‘rilish balansi, oqsillar bilan bog‘lanish, to‘qimalarda taqsimlanish, metabolitlar va buyrak orqali chiqarilish bo‘yicha bo‘shliqlar mavjud. Dastlabki matndagi «60–80% so‘rilish», «1–2 soatda cho‘qqi konsentratsiya», «8–12 soat yarim chiqarilish davri» kabi aniq raqamlar va gematoensefalik to‘siqdan o‘tish da’vosi bu to‘plamda usuli ravshan klinik farmakokinetika ma’lumotlari bilan ta’minlanmagan, shu sabab tavsiyalarga ko‘chirilmaydi.
Xavfsizlik va nega klinikagacha bo‘lgan NOAEL inson dozasi emas
Nakano va hamkasblarining BioPQQ dinatriy tuzi bo‘yicha tajribalarida o‘tkir yuborish, dastlabki 14 va 28 kunlik seriyalar hamda kalamushlarga 13 hafta davomida takroriy og‘iz orqali yuborish qo‘llangan. Mualliflar yuqori dozali ayrim seriyalarda urg‘ochilarda buyrakka ta’sir belgilarini, jumladan buyrakning nisbiy massasi o‘zgarishi, siydikda oqsil va kristallarni xabar qilgan; tiklanish davrida bu topilmalar yo‘qolgan. 13 haftalik protokol uchun tana massasiga kuniga 100 mg/kg NOAEL ko‘rsatilgan, bu o‘sha seriyada sinab ko‘rilgan eng yuqori doza bo‘lgan. Dastlabki matndagi aynan ushbu tadqiqotda 100, 200 va 400 mg/kg sinalgani haqidagi jumla birlamchi abstraktga zid.
NOAEL hayvon turi, muayyan tuz, davomiylik va o‘lchangan natijalar majmuasiga tegishli. Tana yuzasi maydoni bo‘yicha allometrik hisob toksikologik baholashning bir bosqichi bo‘lishi mumkin, ammo noaniqlik koeffitsiyentlari, surunkali ekspozitsiya va odam ma’lumotlarisiz «klinik xavfsizlik zaxirasi 55 baravar» degan xulosani bermaydi. Boshqa yuborish yo‘llari yoki yuqori dozalardagi buyrak shikastlanishi haqidagi eski xabarlarni «afsona» deb bo‘lmaydi; PQQni odamda isbotlangan nefroprotektor deb hisoblash ham asossiz. Mavjud klinik to‘plam bir necha oylik yuqori dozalarning, homiladorlikda, buyrak yetishmovchiligida yoki murakkab dori terapiyasi bilan birga qo‘llanganda xavfsizligini belgilamaydi. Dastlabki matndagi har olti oyda nazorat qilish va 40 mg/kun chegarasi validatsiyalangan protokolga ega emas va bu yerda tavsiya sifatida berilmaydi.
PQQ va CoQ10ning fiziologik jihatdan bir-birini to‘ldirishi ehtimolga mos: ubixinon I/II va III komplekslar orasida elektron uzatadi, hujayra modelida esa PQQ biogenezga aloqador signallarni o‘zgartiradi. Ammo og‘iz orqali qabul qilingan PQQ «mitoxondriyalarni ikki baravar ko‘paytirishi», ichki membranada ubixinonni bevosita qaytarishi yoki faktorial taqqoslashda kombinatsiya klinik jihatdan har bir moddadan ustun kelishi ko‘rsatilmagan. Asetil-L-karnitin, resveratrol, NMN/NR va α-lipoik kislota qo‘shilgan to‘plamlar uchun ham shu qoida amal qiladi: qog‘ozdagi to‘ldiruvchi yo‘llar aralashmaning foydasi, xavfsizligi yoki dozasini belgilamaydi. Asetil-L-karnitin haqidagi alohida material atsetil guruhlari uzatilishini to‘g‘ri tushunishga yordam beradi; u dastlabki «stak» da’vo qilganidek uzun zanjirli yog‘ kislotalarini CPT1 orqali avtomatik tashimaydi.
Hali nimani isbotlash kerak
PQQ — tuzilishi aniqlangan bakterial redoks-kofaktor va hujayra bioenergetikasini o‘rganish uchun foydali eksperimental vosita. Mitoxondrial biogenez gipotezasining eng mazmunli mexanistik asosi CREB va PGC-1α o‘chirilgan Hepa1-6 hujayralaridagi o‘lchovlardan keladi; yurak va nerv to‘qimasining hayvon modellari klinikagacha bo‘lgan qo‘shimcha signallar beradi, biroq yuborish yo‘llari va shikastlanish kontekstlari boshqacha. Odamlardagi dalillar hozircha oraliq yakuniy nuqtalarni o‘lchagan kichik va nazorat darajasi turlicha ishlardan iborat. Keyingi tadqiqotlar to‘qimada o‘lchangan ekspozitsiyani nishon bilan bog‘lashi, ta’sirni mustaqil faktorial dizaynda tasdiqlashi va klinik jihatdan ahamiyatli yakuniy nuqtalarni oldindan belgilashi kerak. Ungacha ko‘rib chiqilgan adabiyotdan na «vitamin maqomi», na infarkt, demensiya yoki diabet uchun davolash protokollari kelib chiqadi.
Ushbu sharh qanday tayyorlandi
Bu 35 ta nashrdan tuzilgan adabiyotlar to‘plamiga asoslangan PQQ haqidagi narrativ sharhdir. 2026-yil 4-oktabrdagi tahrirda CREB–PGC-1α hujayra o‘qi, tajribaviy kardioproteksiya, toksikologiya va bibliografik nomuvofiqliklar haqidagi ayrim asosiy ishlar manzilli tarzda solishtirildi. Oldindan belgilangan protokol bo‘yicha tizimli qidiruv, meta-tahlil yoki har bir tadqiqotning tarafkashlik xavfini rasmiy baholash o‘tkazilmadi; manbalar ro‘yxatini to‘liq deb hisoblamaslik kerak.
Redoks kimyosi, hujayra liniyasidagi gen ekspressiyasi o‘zgarishlari va hayvon modelidagi ta’sir klinik natijalardan alohida ko‘rib chiqiladi. Kulturadagi konsentratsiya va hayvonga berilgan doza odamlar uchun samarali rejimni belgilamaydi. Odamlardagi kichik va xilma-xil tadqiqotlarni talqin qilishda populyatsiya, moddaning shakli, davomiyligi va yakuniy nuqta muhim. Mexanistik uyg‘unlik uzoq muddatli klinik foyda yoki to‘qimalardagi farmakokinetikani isbotlamaydi.
Tez-tez beriladigan savollar
PQQ odamlar uchun vitaminmi?
U bir qator bakterial fermentlarning tasdiqlangan kofaktoridir; odamlarda majburiy PQQga bog‘liq ferment va tanqislik sindromi aniqlanmagan.
PQQ odamlarda mitoxondrial biogenezni isbotlaydimi?
CREB va PGC-1α haqidagi asosiy tajriba belgilangan ekspozitsiyada sichqon jigar hujayralarida o‘tkazilgan. Odatdagi og‘iz orqali qabuldan keyin odam to‘qimalarida o‘xshash ta’sir ko‘rsatilmagan.
Infarktdan keyin PQQ qo‘llash mumkinmi?
Parenteral yuborilgan kalamushlarda shikastlangan maydon kichraygani ko‘rsatilgan. Infarktdan keyingi klinik samaradorlik va davolash dozasi aniqlanmagan.
PQQning xotira va uyquga ta’siri haqida nima ma’lum?
Testlar yoki o‘z-o‘zini hisobot qilishdan foydalangan kichik va nazorati turlicha tadqiqotlar bor. Ular demensiyaning oldini olishni yoki uyquning fiziologik tuzilishi o‘zgarganini isbotlamaydi.
Kalamushlarda NOAEL odamlar uchun bu doza xavfsizligini anglatadimi?
Yo‘q. U muayyan kimyoviy shakl, hayvon turi va tajriba davomiyligiga tegishli; odamlar xavfsizligi va aniq doza uchun alohida ma’lumotlar kerak.
Manbalar
- Hauge JG. Glucose dehydrogenase of Phopshobacterium fischeri: an enzyme containing a novel prosthetic group. J Biol Chem. 1964;239(11):3630-3639.
- Duine JA, Frank J, Westerling J. Purification and properties of methanol dehydrogenase from Hyphomicrobium X. Biochim Biophys Acta. 1978;524(2):277-287.
- Salisbury SA, Forrest HS, Cruse WB, Kennard O. A novel coenzyme from bacterial primary alcohol dehydrogenases. Nature. 1979;280(5725):843-844.
- Kasahara T, Kato T. A new redox-cofactor vitamin for mammals. Nature. 2003;422(6934):832.
- Felton LM, Anthony C. Biochemistry: role of PQQ as a mammalian enzyme cofactor? Nature. 2005;433(7025):E10. [PMID: 15689995]
- Ames BN. Prolonging healthy aging: Longevity vitamins and proteins. Proc Natl Acad Sci USA. 2018;115(43):10836-10844.
- Paz MA, Martin P, Flückiger R, Mah J, Gallop PM. The catalysis of redox cycling by pyrroloquinoline quinone (PQQ) and its derivatives in the presence of amino acids and proteins. Biochem Biophys Res Commun. 1996;226(3):792-799.
- Stites TE, Mitchell AE, Rucker RB. Physiological importance of quinoenzymes and the O-quinone family of cofactors. J Nutr. 2000;130(4):719-727.
- Chowanadisai W, Bauerly KA, Tchaparian E, Wong A, Cortopassi GA, Rucker RB. Pyrroloquinoline quinone stimulates mitochondrial biogenesis through cAMP response element-binding protein phosphorylation and increased PGC-1alpha expression. J Biol Chem. 2010;285(1):142-152.
- Bauerly KA, Storms DH, Harris CB, Hajizadeh S, Sun MY, Cheung CP, Sckolnick BR, Tchaparian E, Satre MA, Rucker RB. Pyrroloquinoline quinone nutritional status alters lysine metabolism and modulates mitochondrial DNA content in the mouse and rat. Biochim Biophys Acta. 2006;1760(11):1741-1748.
- Bauerly K, Harris C, Chowanadisai W, Chesterman A, Moore E, Ingwerson J, Rucker R. Altering pyrroloquinoline quinone nutritional status affects mitochondrial content and mammalian respiratory control. Proc Natl Acad Sci USA. 2011;108(22):9045-9050.
- Huang Y, Chen N, Miao D. Pyrroloquinoline quinone increases the expression and activity of Sirt1 and -3 genes in HepG2 cells. Nutr Res. 2015;35(9):839-849.
- Zhu BQ, Zhou HZ, Teerlink JR, Karliner JS. Pyrroloquinoline quinone (PQQ) decreases myocardial infarct size and improves cardiac function in rat models of ischemia and ischemia/reperfusion. Cardiovasc Drugs Ther. 2004;18(6):421-431.
- Tao R, Karliner JS, Simonis U, Zheng J, Zhang J, Honbo N, Alano CC. Pyrroloquinoline quinone preserves mitochondrial function and prevents oxidative injury in adult rat cardiac myocytes. Biochem Biophys Res Commun. 2007;363(2):257-262.
- Zhu BQ, Simonis U, Cecchini G, Camacho SA, Cheitlin MD, Wu C, Parmley WW, Karliner JS. Comparison of pyrroloquinoline quinone and/or metoprolol on myocardial infarct size and mitochondrial damage in a rat model of ischemia-reperfusion injury. J Cardiovasc Pharmacol Ther. 2006;11(2):119-128.
- Murase K, Hattori A, Kohno M, Hayashi K. Stimulation of nerve growth factor synthesis/secretion in mouse astroglial cells by coenzymes. Biochem Mol Biol Int. 1993;30(4):615-621.
- Yamaguchi K, Sasano A, Urakami T, Tsuji T, Kondo K. Stimulation of nerve growth factor production by pyrroloquinoline quinone and its derivatives in vitro and in vivo. Biosci Biotechnol Biochem. 1993;57(7):1231-1233.
- Hara H, Hiramatsu H, Adachi T. Pyrroloquinoline quinone prevents 6-hydroxydopamine-induced neurotoxicity by inhibiting generation of reactive oxygen species. Neurochem Res. 2007;32(3):489-495.
- Qin J, Wu M, Wang S, Shen J, Zhao Y, Wang Y. Pyrroloquinoline quinone-conferred neuroprotection in rotenone models of Parkinson's disease. Toxicol Lett. 2015;238(3):70-82.
- Martin ZS, Neufeld KG, Smith SA, Cortopassi GA. Pyrroloquinoline quinone protects against rotenone-induced cell death in dopaminergic cells. Neurochem Int. 2015;89:12-20.
- Kobayashi M, Kim J, Kobayashi N, Han S, Nakamura C, Ikebukuro K, Sode K. Pyrroloquinoline quinone (PQQ) prevents fibril formation of alpha-synuclein. Biochem Biophys Res Commun. 2006;349(3):1139-1144.
- Kim J, Kobayashi M, Fukuda M, Ooi D, Hasegawa M, Ikebukuro K, Sode K. Pyrroloquinoline quinone inhibits the fibrillation of amyloid proteins. Prion. 2010;4(1):26-31.
- Zhang Q, Shen M, Ding M, Shen D, Ding F. Protective effect of pyrroloquinoline quinone against Abeta-induced neurotoxicity in human neuroblastoma SH-SY5Y cells. Neurosci Lett. 2009;464(3):165-169.
- Aizenman E, Hartnett KA, Zhong C, Gallop PM, Rosenberg PA. Interaction of the putative essential nutrient pyrroloquinoline quinone with the N-methyl-D-aspartate receptor redox modulatory site. J Neurosci. 1992;12(6):2362-2369.
- Harris CB, Chowanadisai W, Mishchuk DO, Satre MA, Slupsky CM, Rucker RB. Dietary pyrroloquinoline quinone (PQQ) alters indicators of inflammation and mitochondrial-related metabolism in human subjects. J Nutr Biochem. 2013;24(12):2076-2084. [PMID: 24231099]
- Nakano M, Ubukata K, Yamamoto T, Yamaguchi H. Effect of pyrroloquinoline quinone (PQQ) on mental status of middle-aged and elderly persons. FOOD Style 21. 2009;13(7):50-53.
- Nakano M, Yamamoto T, Okamura H, Tsuda A, Kowatari Y. Effects of oral supplementation with pyrroloquinoline quinone on stress, fatigue, and sleep. Funct Foods Health Dis. 2012;2(8):307-324.
- Itoh Y, Tsujitani M, Nakano M, Niutsu M, Murakami H. Effect of the antioxidant supplement pyrroloquinoline quinone disodium salt (BioPQQ™) on cognitive functions. Adv Exp Med Biol. 2016;876:319-325.
- Nakano M, Suzuki H, Tachibana T, Takahashi T, Sugiyama M. Acute and subchronic toxicity studies of pyrroloquinoline quinone (PQQ) disodium salt (BioPQQ™) in rats. Regul Toxicol Pharmacol. 2014;70(1):107-121.
- Liang C, Zhang X, Wang W, Song Y, Jia X. A subchronic oral toxicity study on pyrroloquinoline quinone (PQQ) disodium salt in rats. Food Chem Toxicol. 2015;75:146-150.
- Watanabe A, Hobara N, Tsuji T. Nephrotoxicity of pyrroloquinoline quinone in rats. Hiroshima J Med Sci. 1989;38(1):49-51.
- Zhu W, Klinman JP. Biogenesis of the peptide-derived redox cofactor pyrroloquinoline quinone. Curr Opin Chem Biol. 2020;59:93-99.
- Scarpulla RC. Metabolic control of mitochondrial biogenesis through the PGC-1 family regulatory network. Biochim Biophys Acta. 2011;1813(7):1269-1278.
- Fernandez-Marcos PJ, Auwerx J. Regulation of PGC-1α, a nodal regulator of mitochondrial biogenesis. Am J Clin Nutr. 2011;93(4):884S-890S.
- Bernardi P, Di Lisa F. The mitochondrial permeability transition pore: molecular nature and role as a target in cardioprotection. J Mol Cell Cardiol. 2015;78:100-106.