Мелатонин: митохондрии, рецепторы и применение — NutriFit
Мелатонин: митохондрии, циркадные рецепторы и клиническое применение
Глубокий разбор синтеза мелатонина, MT1/MT2 и митохондриального сигнала, редоксхимии, клеточной гибели и клинической хронобиологии. Человеческие исследования сна и обмена глюкозы отделены от моделей нейропротекции; объяснены формы, взаимодействия и пределы лабораторных показателей.
Мелатонин известен прежде всего как сигнал биологической ночи, но его биология не заканчивается эпифизом и засыпанием. N-ацетил-5-метокситриптамин обнаруживают в разных тканях, а в экспериментальных системах он участвует в химических реакциях с активными формами кислорода и азота, изменяет клеточные сигналы и работу митохондрий. Эти направления связаны между собой, однако отвечают на разные вопросы: где образуется молекула, с какой мишенью она взаимодействует и улучшает ли её приём конкретный исход у человека. Для специалиста особенно важно не подменять последний вопрос убедительным изображением первых двух.
В этой статье путь от триптофана к мелатонину соединён с устройством мембран, рецепторной передачей сигнала, редоксхимией и клинической хронобиологией. Митохондриальные опыты здесь рассматриваются в их собственном масштабе, а исследования сна и обмена глюкозы — с указанием формы, дозы, популяции и способа измерения. Такой подход позволяет объяснить потенциальную защиту клетки, не превращая её в неподтверждённый протокол лечения инсульта, опухоли или «митохондриального дефицита». Практическая ценность мелатонина определяется показанием, временем введения и лекарственной формой, а не числом перечисленных молекулярных механизмов.
Эволюционная гипотеза и современная функция ночного сигнала
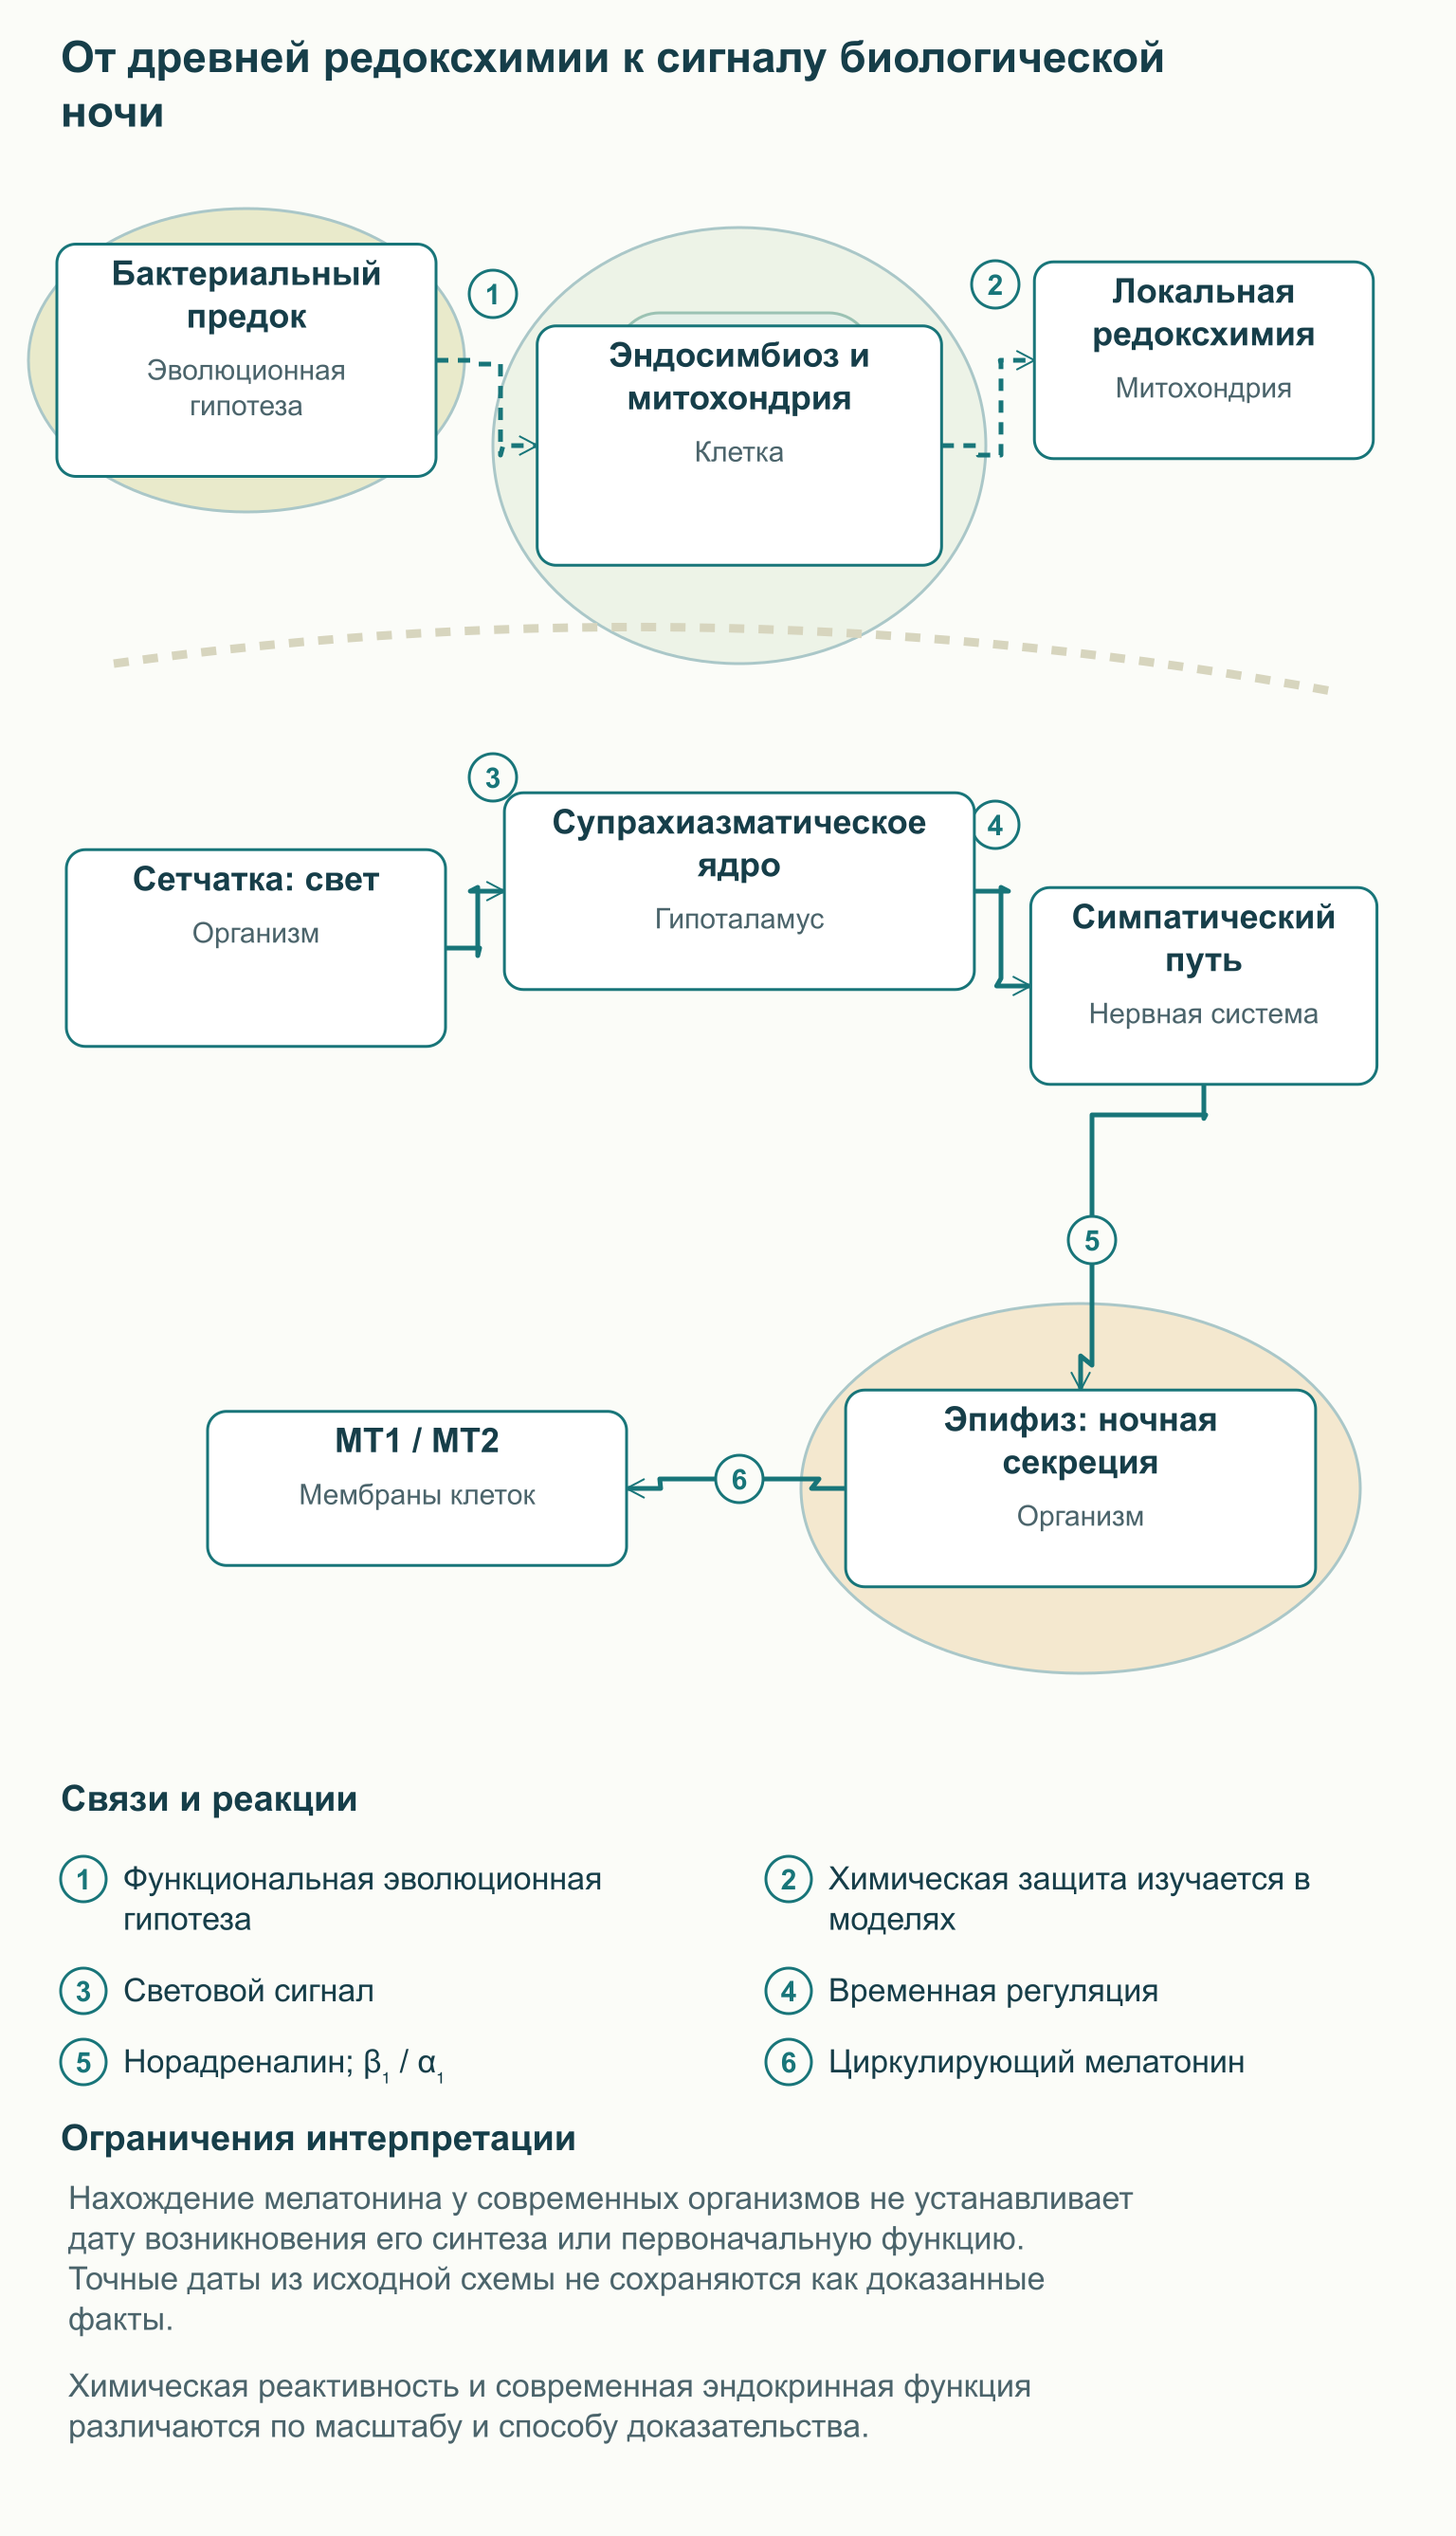
Митохондрии произошли от бактериального предка, и их дыхательная цепь сохраняет связь с этой эволюционной историей. Перенос электронов на кислород обеспечивает получение энергии, но часть электронов может уходить на образование супероксида, поэтому клетке нужны системы контроля окислительных реакций. Распространение мелатонина за пределами позвоночных делает правдоподобной гипотезу о древней химической защитной функции этой молекулы. Однако обнаружение вещества в современных организмах само по себе не датирует появление его синтеза и не показывает, какой была его первая биологическая функция.
Поэтому история о возникновении мелатонина строго 2,5 миллиарда лет назад и последующем появлении эндокринной функции строго 500 миллионов лет назад слишком определённа. Для такого календаря требовались бы независимые эволюционные данные, а не перенос возраста кислородных изменений Земли на конкретную ферментную систему. Более аккуратная реконструкция связывает древнюю редоксхимию индольных соединений с последующей специализацией сигнальных путей у животных. На схеме эти события представлены как гипотеза функционального развития, без неподтверждённых дат и без утверждения, что у всех предков отсутствовали какие-либо рецепторные мишени.
У человека эпифизарная секреция создаёт временной сигнал, который помогает организму различать биологический день и ночь. Сведения об освещении поступают от сетчатки к супрахиазматическому ядру гипоталамуса, а дальше через промежуточные нервные звенья и симпатический путь достигают эпифиза. В этой цепи участвуют паравентрикулярная область, спинальные симпатические нейроны и верхний шейный ганглий; норадреналин действует на β₁- и α₁-адренорецепторы пинеалоцитов. Ночью этот механизм поддерживает синтез мелатонина, тогда как свет в биологическую ночь способен подавлять секрецию и изменять циркадную фазу.
Сон зависит также от накопленного давления сна, поведения, заболеваний и среды, поэтому ночной гормональный сигнал не равнозначен выключателю сознания. Человек может оставаться бодрствующим при высоком эндогенном мелатонине или испытывать сонливость при низком его уровне. Именно поэтому увеличение количества гормона не всегда устраняет причину бессонницы. Для понимания жалобы нужно различать недостаточную возможность спать, трудности сна при подходящем расписании и несовпадение внутренней ночи с социально желаемым временем.
Циркулирующий мелатонин и локальные тканевые системы
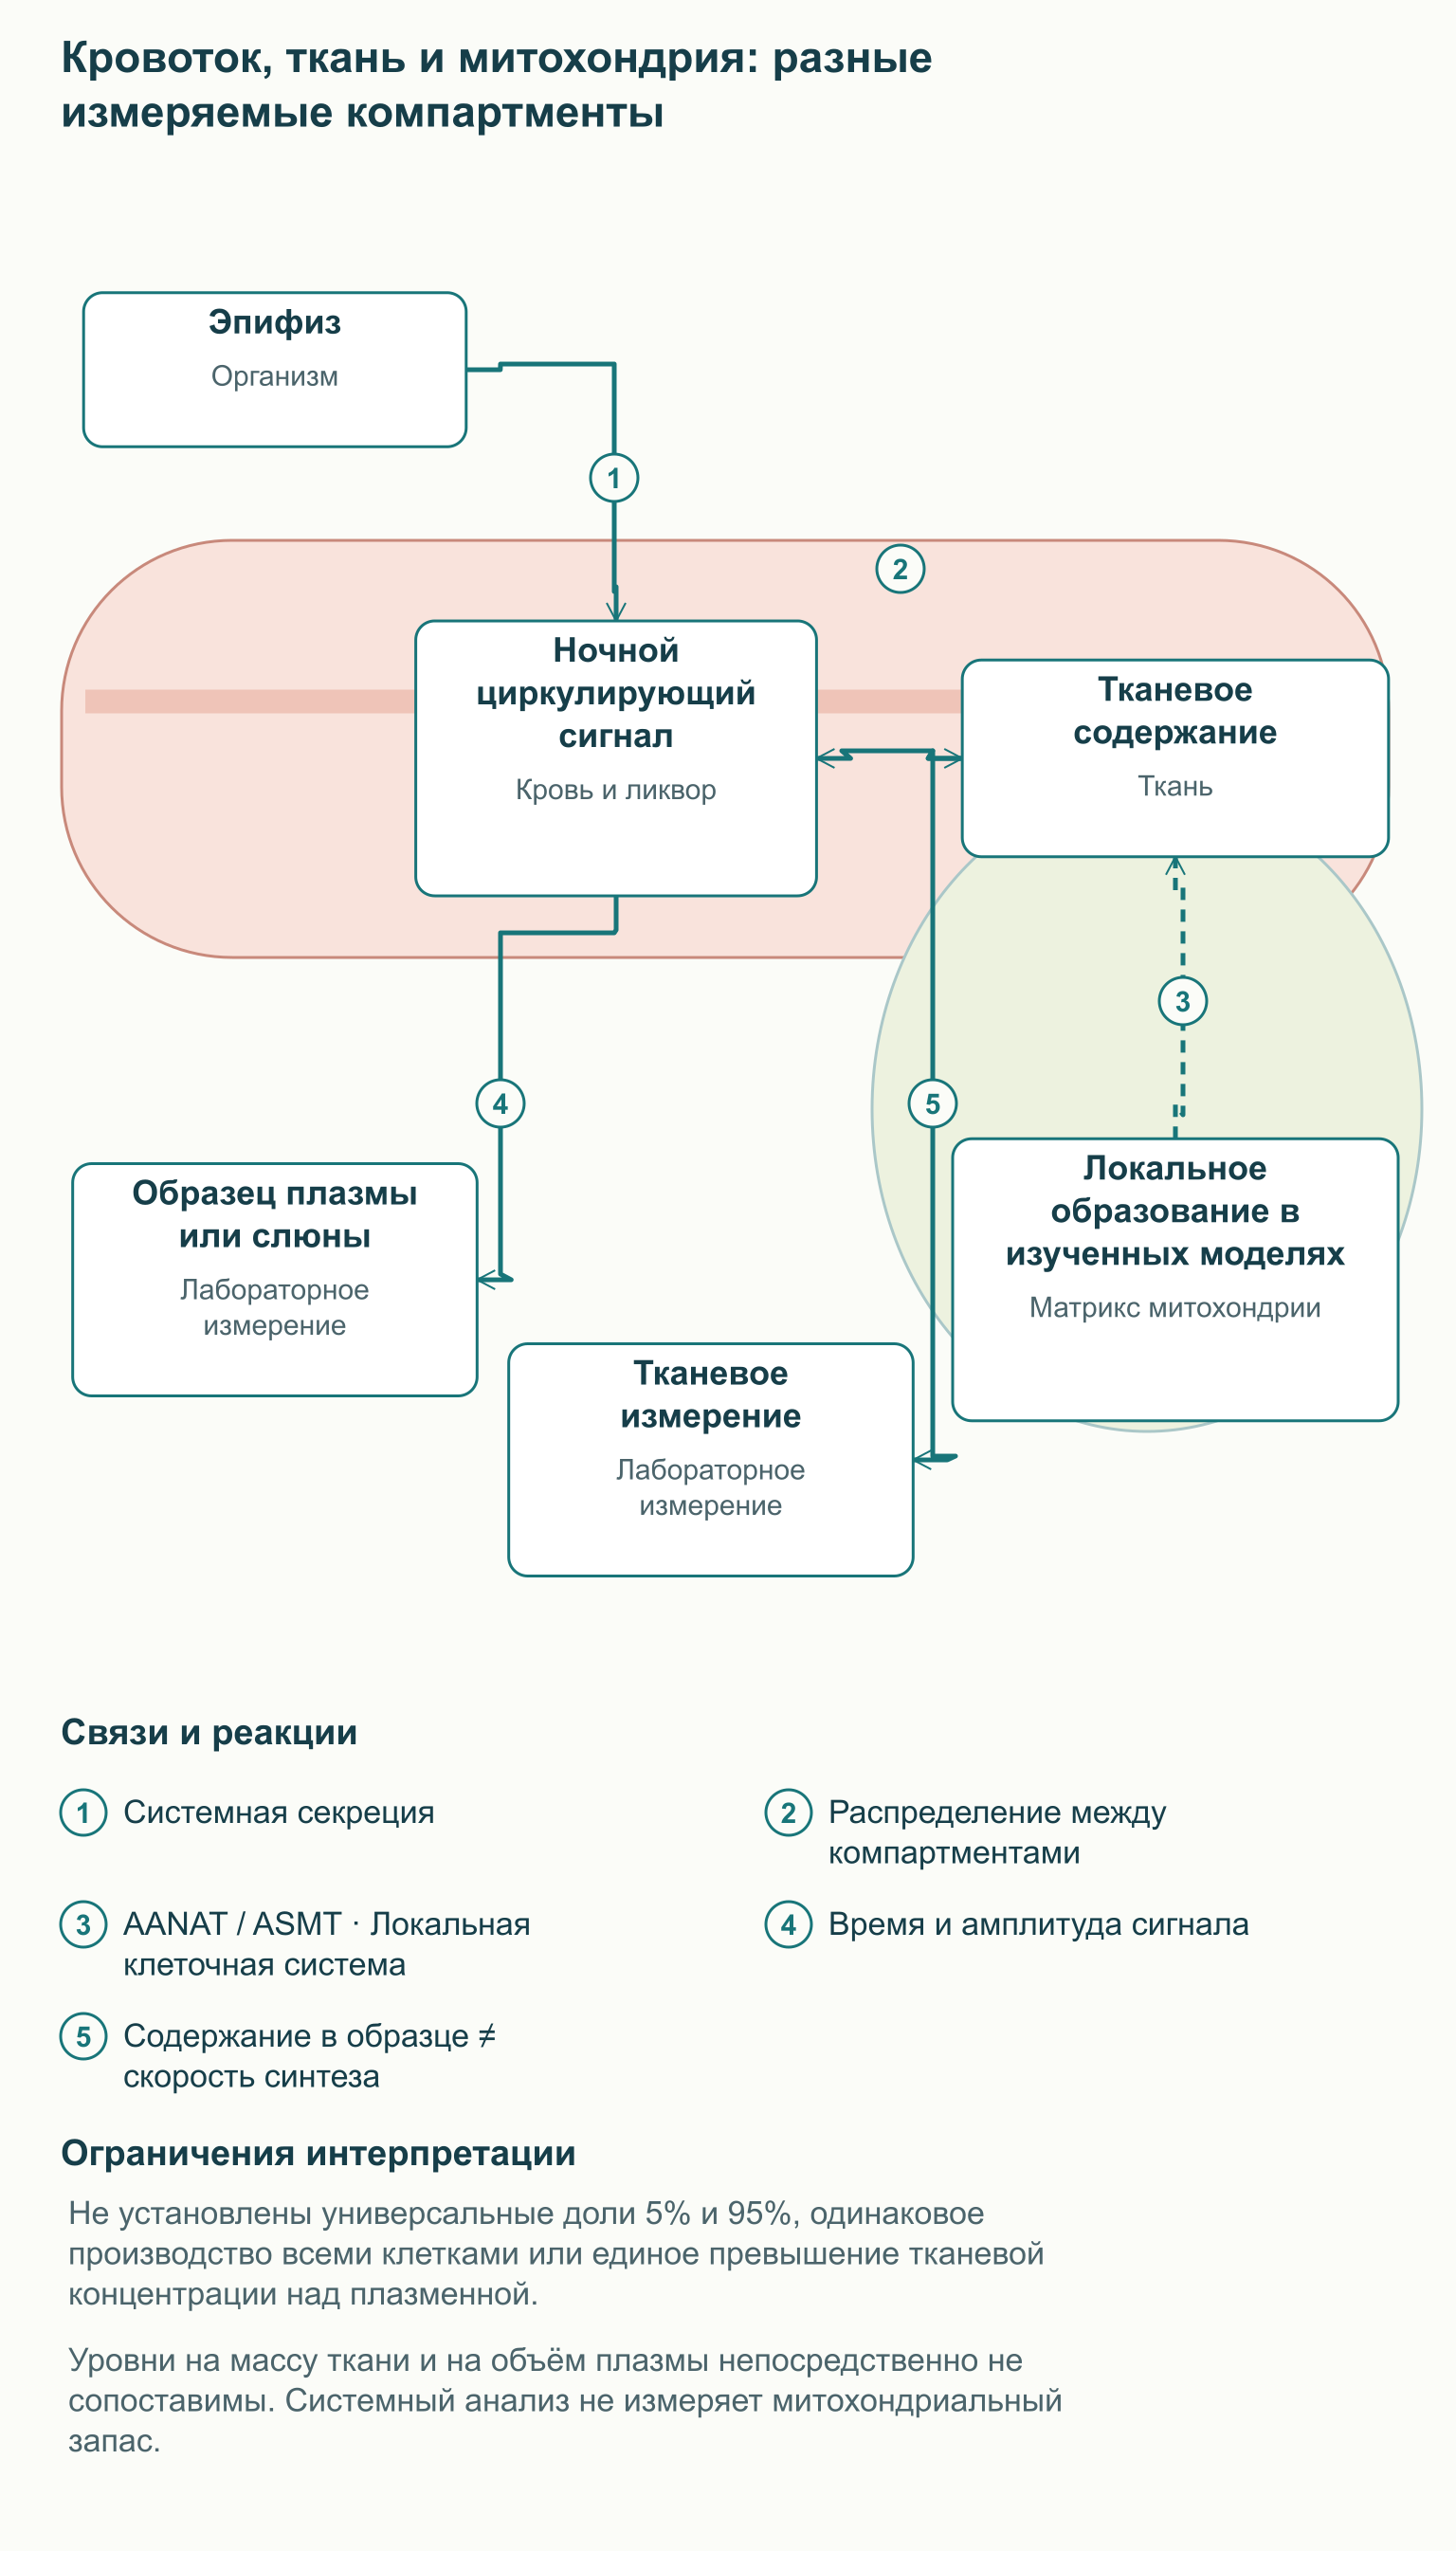
Эпифиз — важнейший источник выраженного ночного ритма циркулирующего мелатонина, но вещество и ферменты его образования обнаружены и вне этой железы. К таким тканям относятся желудочно-кишечный тракт и некоторые клеточные системы мозга; конкретные результаты зависят от вида, ткани и аналитического метода. Работа с биопсией или гомогенатом отвечает на вопрос о содержании вещества в образце, но не обязательно устанавливает скорость его синтеза. Чтобы говорить о локальном образовании, полезны измерения ферментной активности, метаболического превращения меченого субстрата и контроль чистоты выделенной органеллы.
В исследовании человеческого гепатобилиарного и желудочно-кишечного тракта мелатонин измеряли в биопсиях слизистой, печени, желчи и образцах крови из разных сосудистых бассейнов. Это подтверждает, что плазма — лишь один из измеряемых компартментов, однако радиоиммунологическое определение в ткани не является прямым измерением митохондриального синтеза. Содержание на массу ткани также нельзя без дополнительных допущений сравнивать с концентрацией на объём плазмы. Различаются знаменатель, связывание, распределение и возможность попадания циркулирующего вещества в ткань.
Представление о двух совершенно независимых пулах полезно как первое приближение, но слишком жёстко для реальной физиологии. Циркулирующий мелатонин может проникать в ткани, а локальное образование не обязательно означает абсолютную изоляцию от кровотока. Нельзя считать установленным, что все ядросодержащие клетки человека постоянно синтезируют одинаково большой митохондриальный пул. Тем более имеющиеся опыты не позволяют приписать эпифизу менее 5%, а митохондриям более 95% общего производства в человеческом организме.
Уровень мелатонина ночью зависит от возраста, индивидуальной амплитуды ритма, освещения, времени забора и метода анализа. Даже убедительно высокий показатель в отдельном тканевом эксперименте не устанавливает универсальное превышение плазменного уровня в сто или тысячу раз. После удаления эпифиза в животной модели можно изучать вклад железы в конкретный показатель, но такой опыт не даёт готовой количественной карты всего человека. В клинической практике анализ крови или слюны используют для оценки временного сигнала, а не для подсчёта внутриклеточного антиоксидантного запаса.
Синтез: от триптофана к ацетилированию и метилированию
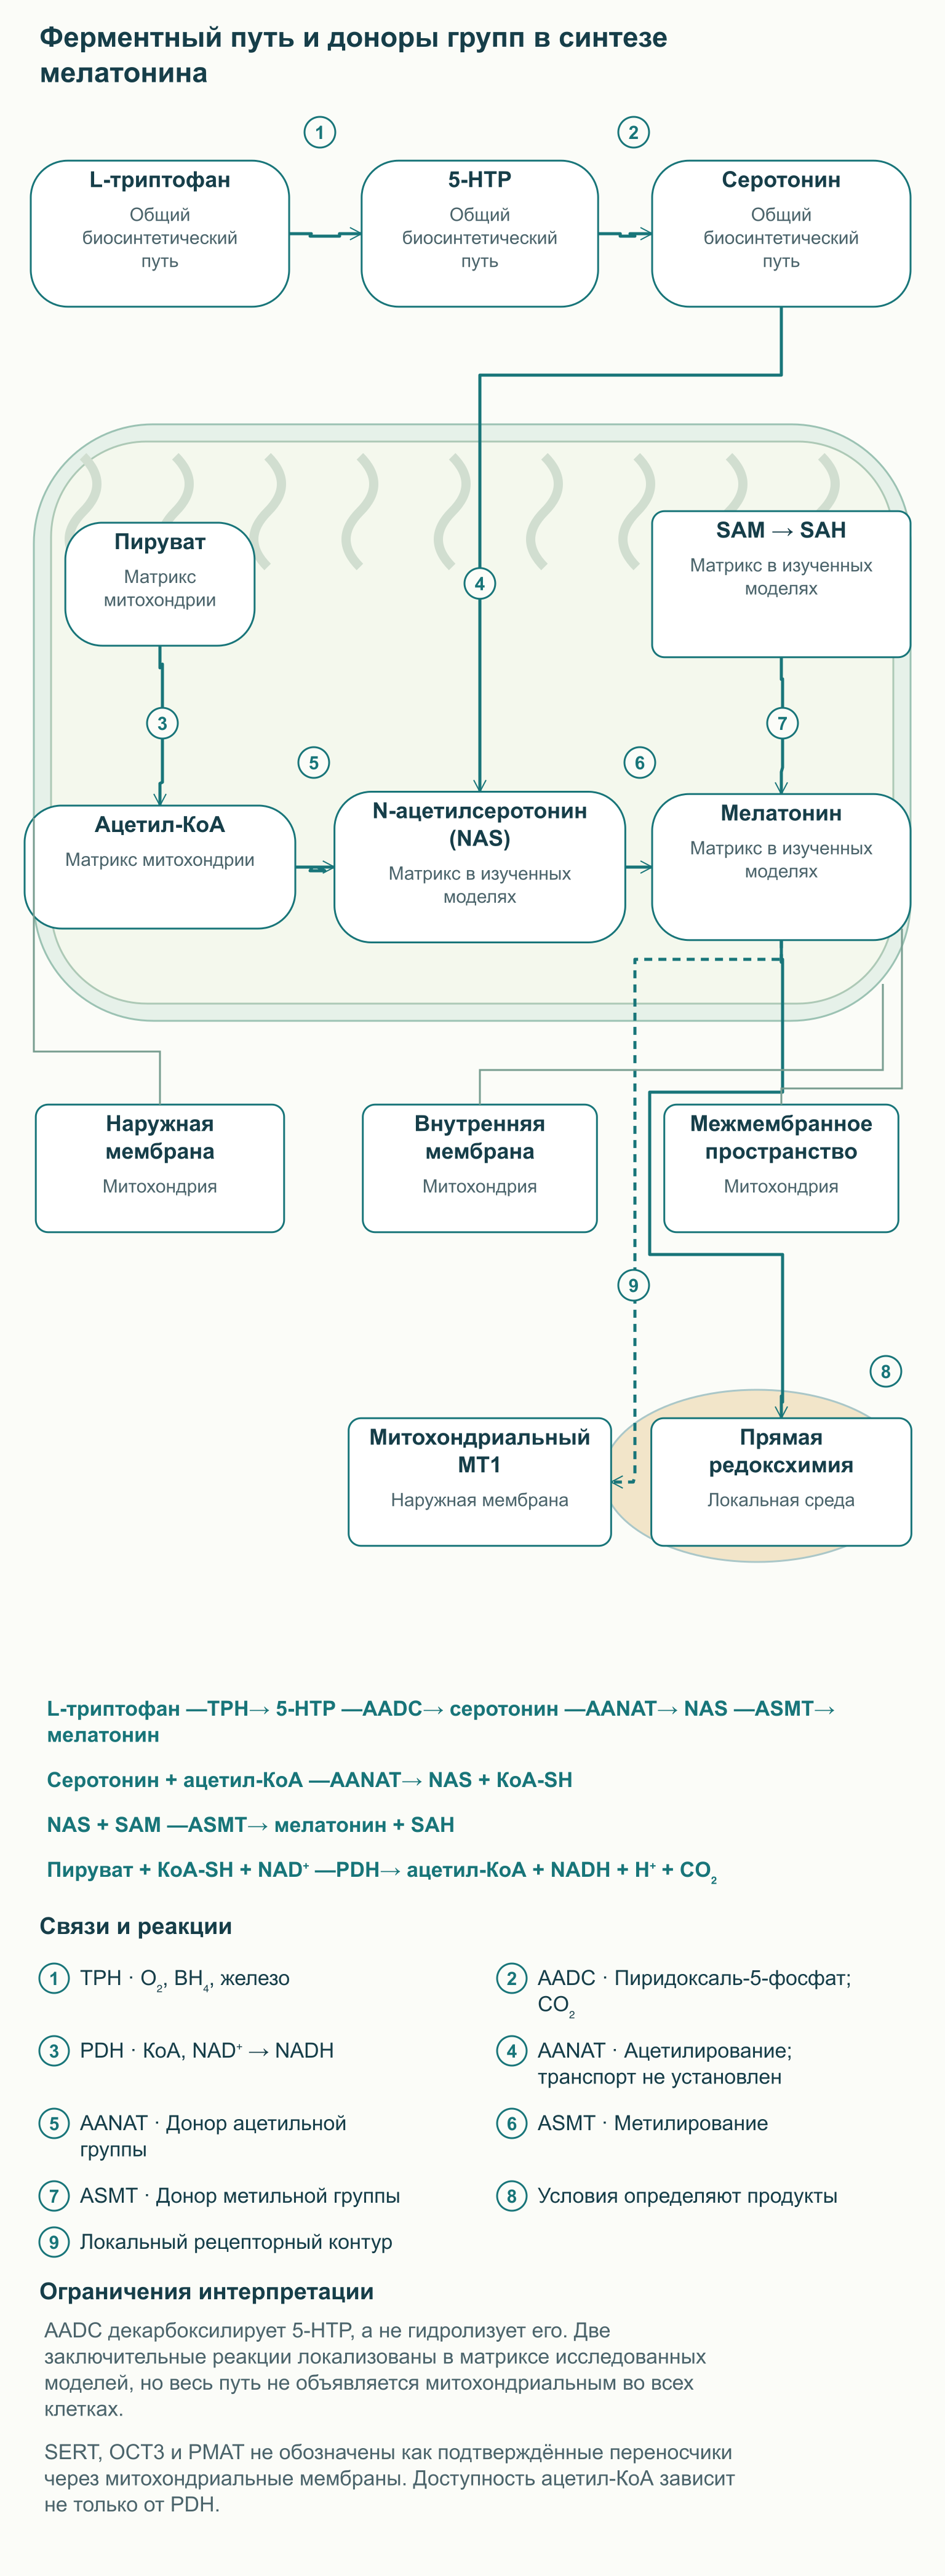
Классический путь образования мелатонина начинается с L-триптофана и включает четыре последовательных превращения. Триптофангидроксилаза TPH образует 5-гидрокситриптофан, или 5-HTP, с участием кислорода и тетрагидробиоптерина BH₄; каталитическая система зависит от железа. Декарбоксилаза ароматических L-аминокислот AADC затем удаляет карбоксильную группу с образованием серотонина и CO₂. Кофактором AADC служит пиридоксаль-5-фосфат, активная форма витамина B6: это декарбоксилирование, а не гидролиз.
Две заключительные реакции используют другие доноры химических групп. Арилалкиламин-N-ацетилтрансфераза AANAT переносит ацетильную группу с ацетил-КоА на серотонин, образуя N-ацетилсеротонин, или NAS, и свободный КоА. Ацетилсеротонин-O-метилтрансфераза ASMT, также известная как HIOMT, переносит метильную группу с S-аденозилметионина SAM на гидроксильную группу NAS. В результате образуются мелатонин и S-аденозилгомоцистеин SAH, поэтому ацетилирование и метилирование требуют не только наличия ферментов, но и доступности соответствующих субстратов.
Путь можно прочитать без специальной химической записи: L-триптофан —TPH→ 5-HTP —AADC→ серотонин —AANAT→ NAS —ASMT→ мелатонин. Стрелка здесь обозначает ферментную реакцию, а не перемещение молекулы между клеточными отделами. В эпифизе AANAT является важным регулируемым звеном ночной секреции, но название «единственный лимитирующий фермент» не стоит автоматически переносить на любую ткань и экспериментальную ситуацию. Поток через весь путь зависит также от предшественников, активности ASMT и удаления продуктов.
В работе Suofu и коллег ферменты AANAT и ASMT обнаружили в митохондриальном матриксе в экспериментальных системах, связанных с мозгом мыши и нейрональными клетками. Исследование включало выделенные митохондрии и клетки N2a, поэтому оно существенно для гипотезы локального синтеза, но не описывает все ткани человека. Наличие двух заключительных ферментов в матриксе не доказывает, что все четыре стадии всегда проходят там же. Предшественники могут поступать из других отделов клетки, а путь их переноса нуждается в самостоятельном доказательстве.
Серотониновый транспортер SERT, OCT3 и PMAT участвуют в переносе моноаминов в определённых клеточных системах, но это не делает их установленными переносчиками через обе митохондриальные мембраны. Поэтому схема не проводит через них подтверждённую стрелку доставки серотонина в матрикс. Различие между известной реакцией и неустановленным транспортом особенно важно для специалиста: иначе карта выглядит законченной только благодаря добавленной без основания детали. По той же причине участие B6 или SAM в реакции не доказывает пользу их дополнительного приёма для сна у человека без соответствующего дефицита.
Ацетил-КоА, PDH и энергетический обмен
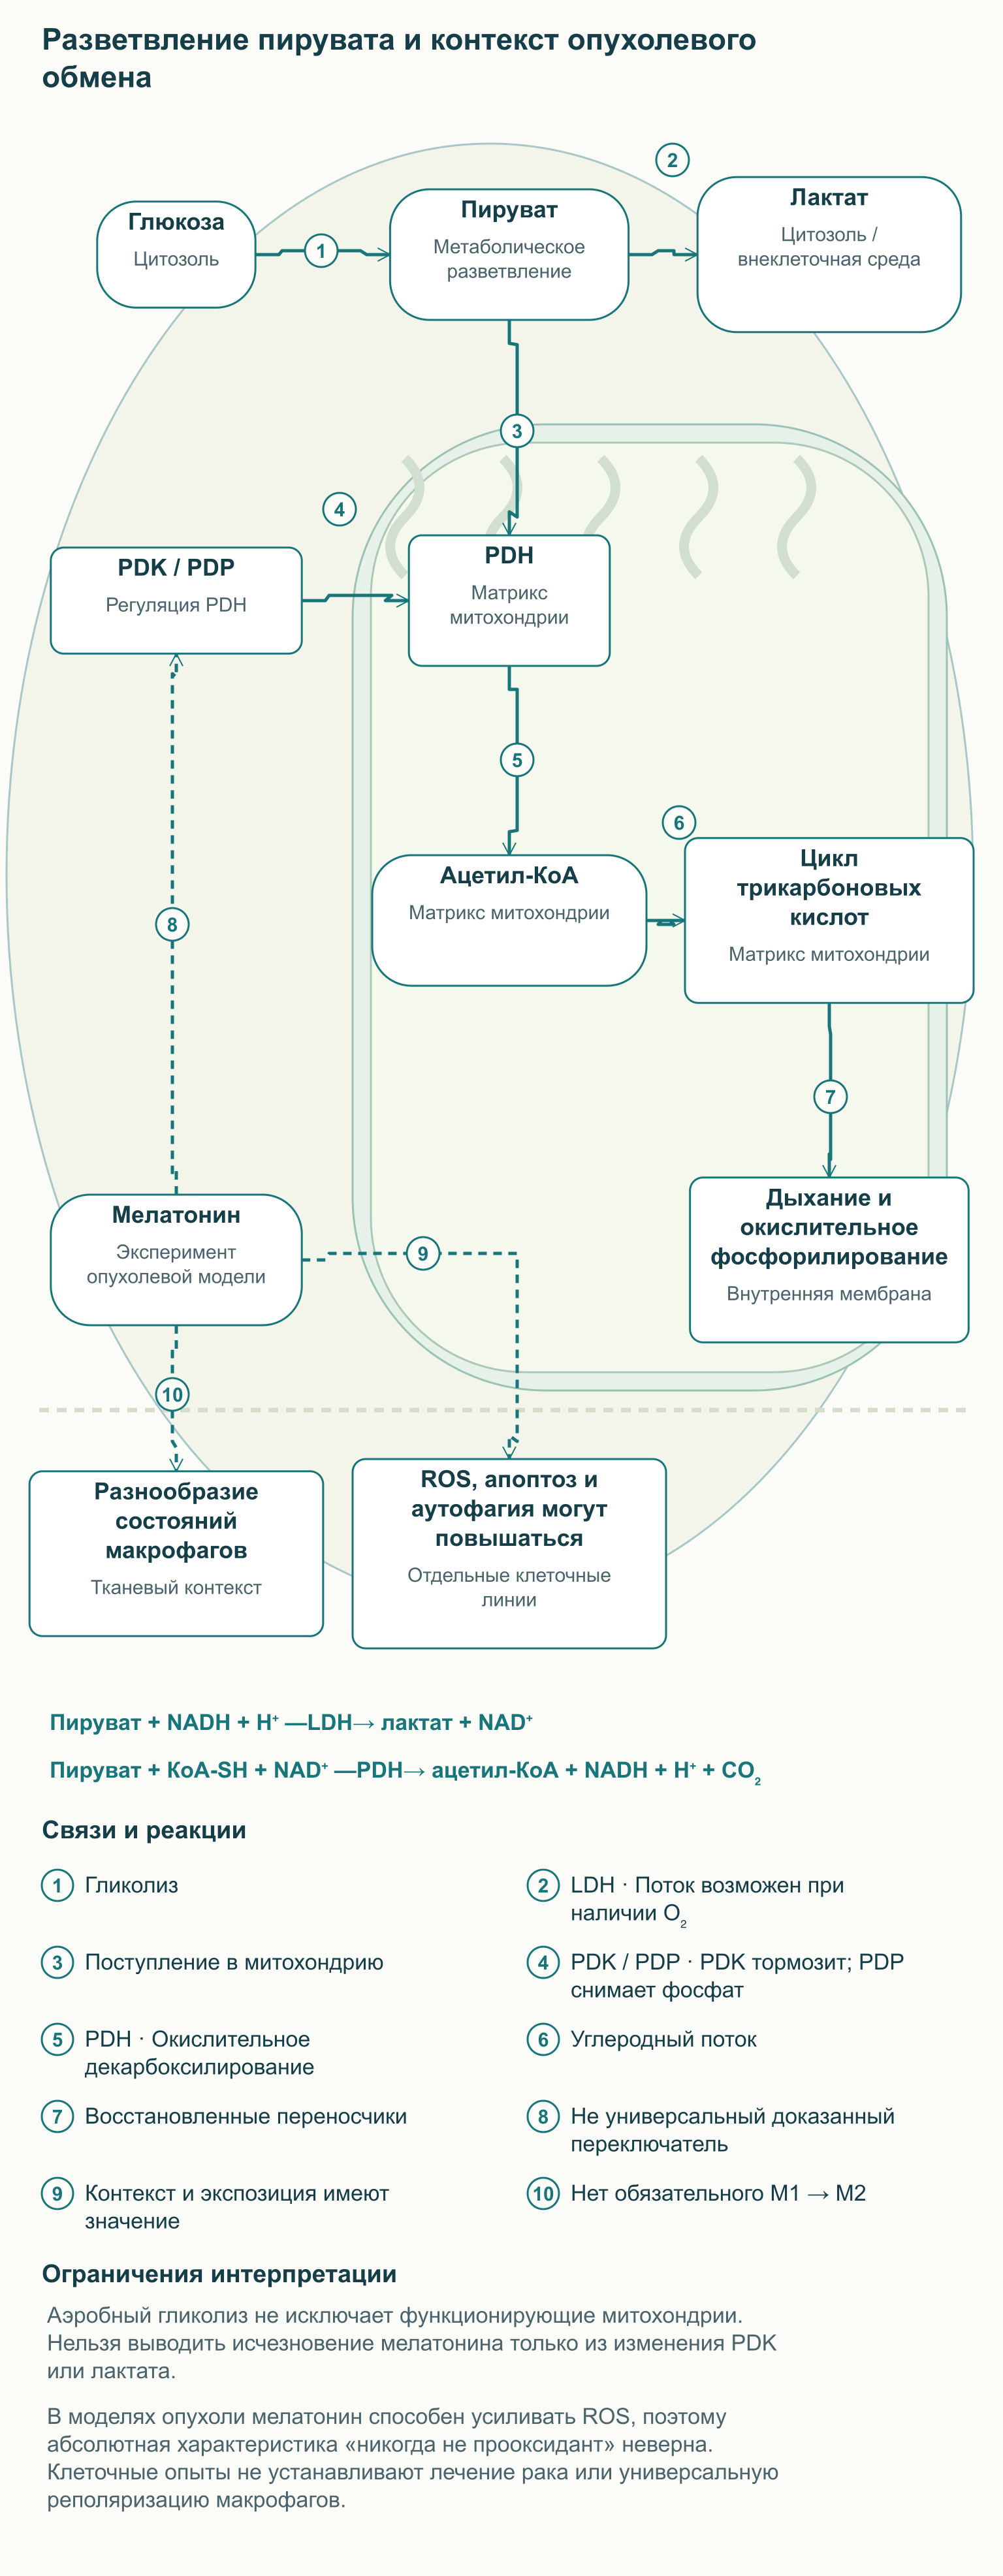
Ацетил-КоА связывает образование мелатонина с более широкой сетью клеточного обмена. Пируватдегидрогеназный комплекс PDH катализирует окислительное декарбоксилирование пирувата, поступившего в митохондрию из гликолиза. Реакция записывается так: пируват + КоА-SH + NAD⁺ —PDH→ ацетил-КоА + NADH + H⁺ + CO₂. Ацетильная группа может затем использоваться в цикле трикарбоновых кислот или других реакциях, включая ацетилирование серотонина там, где присутствует соответствующая ферментная система.
PDH — многокомпонентный комплекс, а не простой канал, открывающийся при хорошем сне. Его работа зависит от тиаминпирофосфата, липоамидной группы, FAD, КоА и NAD⁺, а также от энергетического и редокс-состояния матрикса. Киназы PDK фосфорилируют комплекс и снижают его активность, тогда как фосфатазы PDP снимают это торможение. Соотношения NADH/NAD⁺ и ацетил-КоА/КоА отражают, насколько клетка нуждается в дальнейшем окислении пирувата.
Субстратная связь PDH с AANAT не означает, что при торможении PDH митохондриальный мелатонин обязательно исчезает. Ацетил-КоА может образовываться из жирных кислот и других источников, а его доступность определяется тканью и метаболическим состоянием. Даже снижение конкретного потока не равно нулевому содержанию вещества в органелле. Для утверждения о полной остановке синтеза понадобилось бы непосредственно измерить этот синтез при заданном вмешательстве, а не вывести результат только из красивой цепочки стрелок.
Практически эта связь помогает понять, почему исследования мелатонина пересекаются с биоэнергетикой, но не обосновывает самостоятельное назначение «активаторов PDH». Она также не позволяет диагностировать дефицит митохондриального мелатонина по лактату крови или усталости. Эти показатели имеют множество причин и не обладают нужной специфичностью. При оценке механизма нужно выяснять, измеряли ли авторы активность фермента, метаболический поток, концентрацию продукта или только экспрессию соответствующего гена.
MT1 и MT2: рецепторный сигнал в мембране
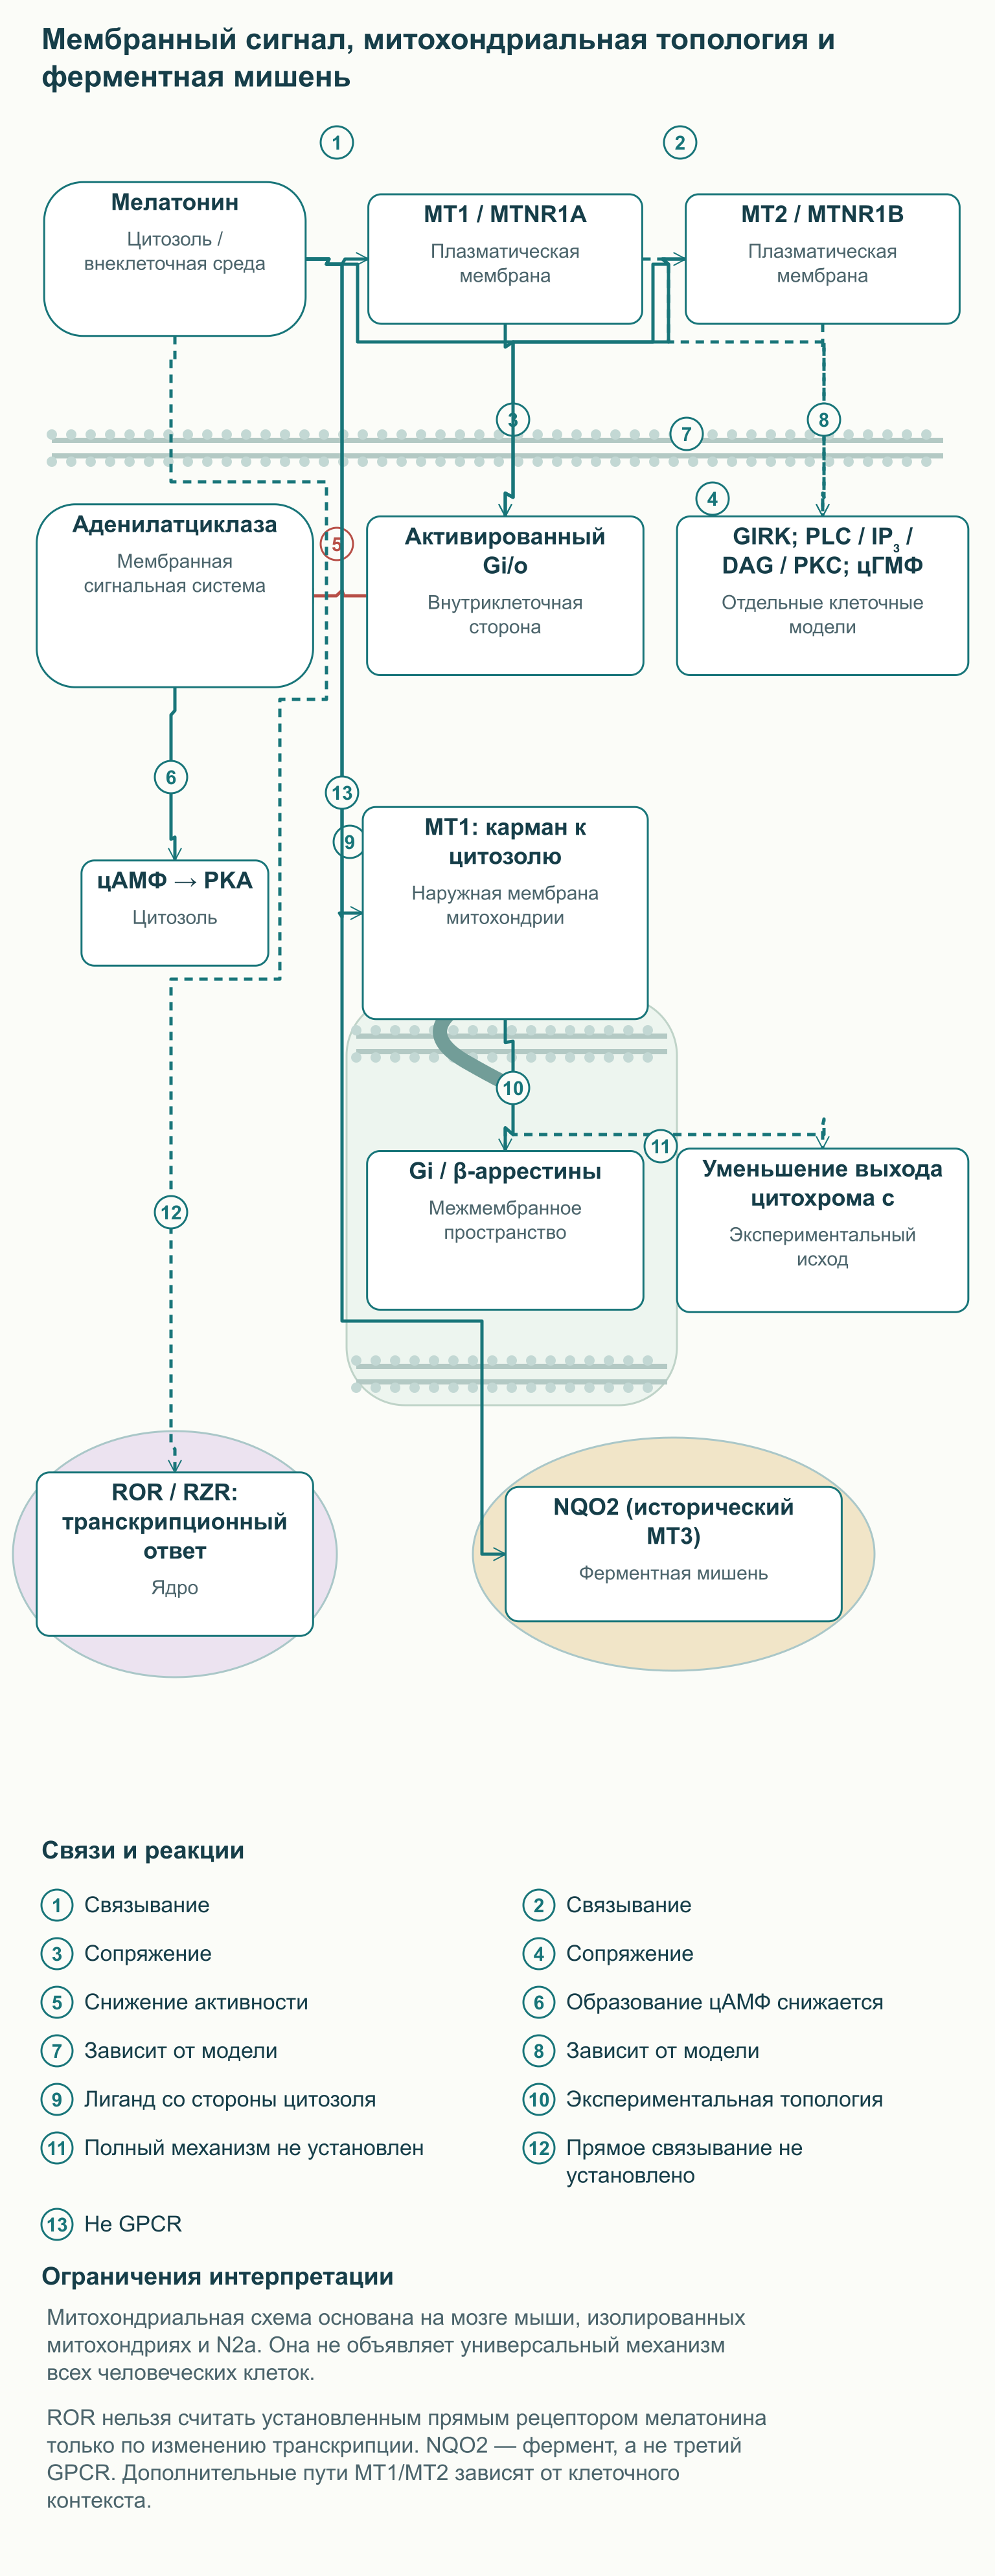
MT1 и MT2 — рецепторы, сопряжённые с G-белками, которые кодируются генами MTNR1A и MTNR1B. Их устройство включает семь трансмембранных спиралей и участок связывания лиганда; структурные исследования человеческих рецепторов показали детали узнавания агонистов. При активации рецептор изменяет взаимодействие с G-белком, а не просто удерживает молекулу возле мембраны. Связь с Gi/o позволяет снижать активность аденилатциклазы и образование циклического AMP, или цАМФ, — одного из внутриклеточных посредников.
Снижение цАМФ может уменьшать активацию протеинкиназы A, однако итоговый ответ определяется устройством конкретной клетки. G-белок состоит из α- и βγ-компонентов; их сигналы способны влиять на ионные каналы и другие ферментные пути. В нейрональных системах обсуждаются калиевые каналы GIRK и изменение возбудимости, а в отдельных моделях — PLC, IP₃, DAG, PKC и цГМФ. Нельзя складывать все эти наблюдения в обязательную программу, которая одинаково выполняется каждым MT1 или MT2 в любом органе.
Характеристика
MT1
MT2
Ген и хромосомная область
MTNR1A, 4q35.2
MTNR1B, 11q14.3
Класс мишени
Семитрансмембранный GPCR
Семитрансмембранный GPCR
Хорошо подтверждённое сопряжение
Gi/o, снижение цАМФ в соответствующих системах
Gi, снижение цАМФ в соответствующих системах
Дополнительные пути
Ионные каналы и киназы; результат зависит от клетки
PLC/PKC и другие посредники в отдельных моделях
Физиологический контекст
Ночной сигнал и нейрональная регуляция
Циркадная регуляция и метаболические ответы
Как понимать аффинность
Параметр конкретного лиганда и метода
Параметр конкретного лиганда и метода
Константа диссоциации Kd описывает связывание в определённых экспериментальных условиях, поэтому её нельзя представлять как неизменное число для всех тканей и всех препаратов. Структуры с рамелтеоном или другими агонистами не означают, что у этих веществ полностью одинаковая фармакокинетика и клинический эффект с мелатонином. Аналогично различие между MT1 и MT2 не сводится к формуле «один усыпляет, другой сдвигает часы». Циркадная система объединяет разные клетки и сигналы, а итоговый фазовый ответ зависит от времени воздействия.
Сосудистые эффекты также нельзя свести к универсальному противопоставлению сужения через MT1 и расширения через MT2. Ответ зависит от сосудистого бассейна, состояния ткани, концентрации и других регуляторных систем. Такая упрощённая схема особенно опасна, если из неё делают вывод о предсказуемом снижении давления у конкретного пациента. В клинике давление и самочувствие оценивают непосредственно, а механистическое описание используют для постановки вопроса, а не вместо наблюдаемого исхода.
Митохондриальный MT1: точная ориентация и пределы опыта
Исследование Suofu предложило механизм локального мелатонинового сигнала, который авторы назвали аутомитокринным. В исследованных системах MT1 находился на наружной митохондриальной мембране, причём лигандсвязывающая сторона была обращена к цитозолю. Gi и β-аррестины обнаруживались со стороны межмембранного пространства. Это необычная топология, и перестановка её сторон меняет смысл всей схемы: мелатонин не должен изображаться связывающимся с карманом, обращённым внутрь межмембранного пространства.
Локально образованный мелатонин может покинуть матрикс и взаимодействовать с мишенью наружной мембраны, но путь его перемещения нельзя считать полностью описанным только по положению ферментов. В опытах активация рецепторной системы сопровождалась снижением локального цАМФ и уменьшением выхода цитохрома c. При этом Gi активируется как тормозящий регулятор аденилатциклазы: выражение «мелатонин подавляет Gi» переворачивает причинную связь. Авторы не установили окончательно весь механизм ограничения выхода цитохрома c, поэтому стрелки к Bax, PKA и поре не следует выдавать за завершённую универсальную последовательность.
Для интерпретации существенны и технические ограничения этой работы. Помимо ткани мозга мыши использовались клетки N2a с рекомбинантным MT1, а специфичность обнаружения эндогенного рецептора представляла методическую трудность. Авторы не показали непосредственно, что именно мелатонин митохондриального происхождения обеспечивает такую же нейропротекцию in vivo у человека. Следовательно, локальная рецепторная система — исследовательское объяснение возможного клеточного эффекта, а не основание подсчитывать человеческую суточную продукцию или выбирать таблеточную дозу для защиты мозга.
ROR/RZR и NQO2: разные уровни взаимодействия
Ядерные рецепторы семейства ROR регулируют транскрипцию, но прямое связывание мелатонина с ними не следует считать установленным на основании старой рецепторной схемы. В первичной работе с овечьей гипофизарной тканью исследовали наличие RORα и специфического ядерного связывания меченого мелатонина; наличие РНК рецептора не сопровождалось обнаружением соответствующего ядерного связывания. В клетках рака молочной железы описывали изменение активности RORα под действием мелатонина, однако транскрипционный эффект может быть непрямым. Различие между изменением работы фактора и физическим связыванием с ним принципиально для выбора термина «рецептор».
Поэтому регуляция COX-2, iNOS, NF-κB или воспалительных генов не изображается как доказанная универсальная цепочка «мелатонин — ROR — подавление воспаления». Наблюдаемое изменение этих путей может зависеть от клеточной модели, времени и дозы, а также от других сигнальных мишеней. Выражение «ядерный эффект» описывает место конечного ответа, но не обязательно место первичного связывания молекулы. Эта оговорка сохраняет содержание геномной регуляции, устраняя неверно назначенного прямого посредника.
Исторический сайт MT3 связан с другой молекулярной мишенью — ферментом хинонредуктазой-2 NQO2. Его идентифицировали с помощью выделения белка, молекулярных методов и экспрессии человеческого фермента в клетках; позднее взаимодействие изучали кинетическими и структурными методами. NQO2 не является третьим семитрансмембранным мелатониновым рецептором и не должен стоять в одном ряду с MT1 и MT2 как ещё один GPCR. Связывание или ингибирование фермента также не гарантирует общего «обезвреживания всех хинонов»: результат зависит от субстрата и условий редокс-реакции.
Прямая редоксхимия: скорость реакции и конкуренция в клетке
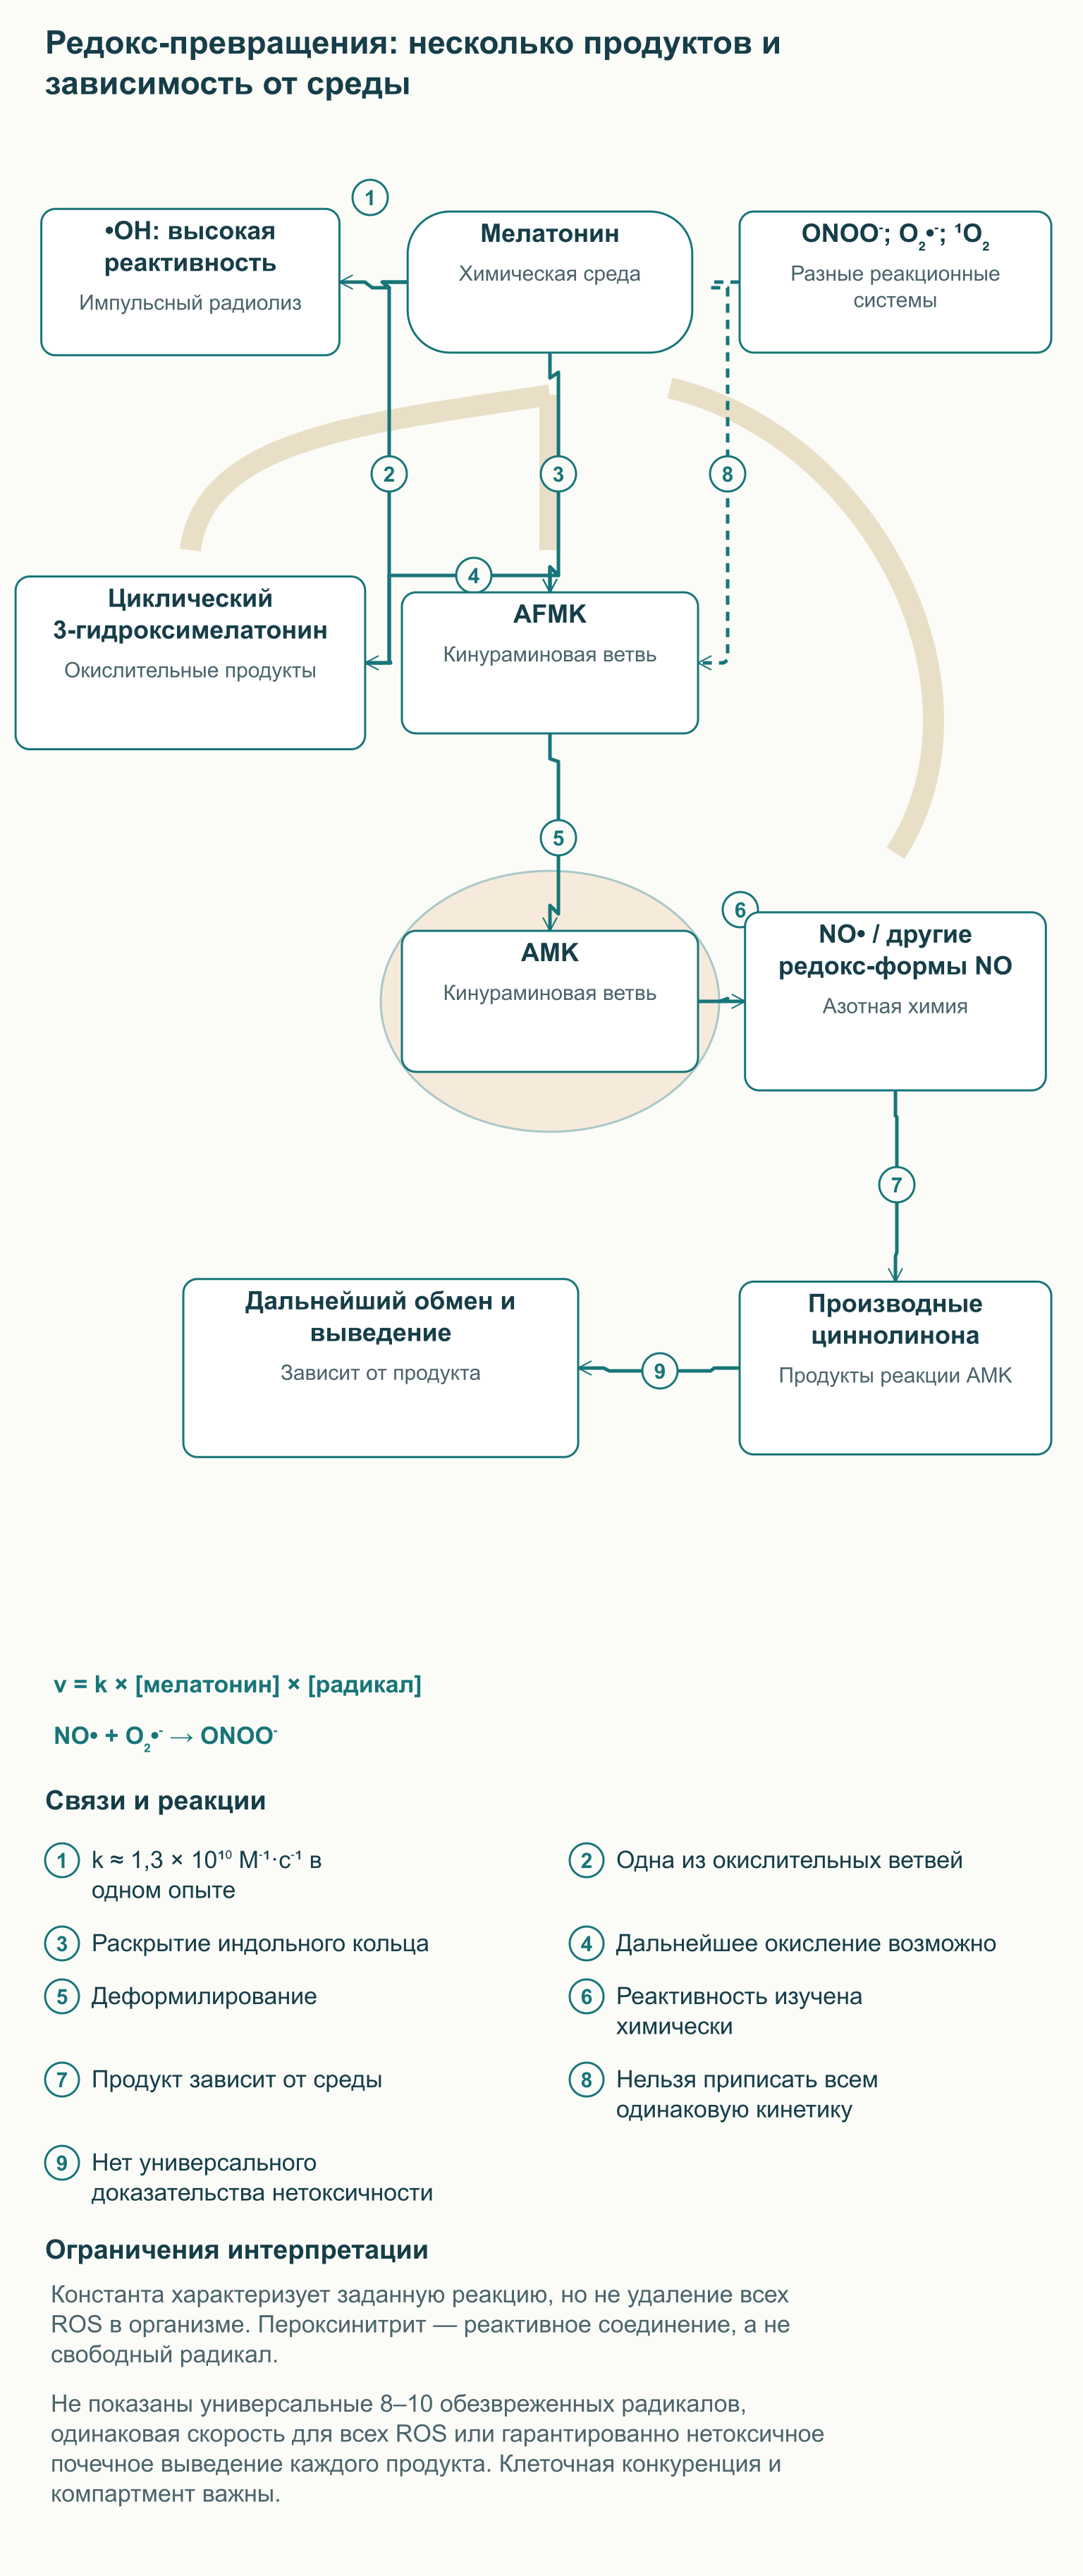
Мелатонин способен вступать в реакции с отдельными активными формами кислорода и азота без участия мембранного рецептора. В одном из исследований импульсного радиолиза скорость реакции с гидроксильным радикалом характеризовалась константой около 1,3 × 10¹⁰ М⁻¹·с⁻¹, близкой к диффузионному пределу. Такая величина показывает высокую химическую реактивность при заданных условиях опыта. Она не означает, что небольшая пероральная доза успевает нейтрализовать каждый гидроксильный радикал во всех тканях организма.
Скорость реакции второго порядка зависит не только от константы k, но и от концентраций обоих участников: v = k × [мелатонин] × [радикал]. В клетке радикал одновременно встречает белки, липиды, нуклеиновые кислоты и другие низкомолекулярные соединения. Поэтому вероятность реакции определяется конкуренцией, расстоянием до места образования и доступностью вещества в соответствующем компартменте. Гидроксильный радикал крайне короткоживущ, и для него предотвращение образования зачастую важнее доставки «ловушки» из кровотока после начала повреждения.
Другие активные формы нельзя автоматически приравнивать к гидроксильному радикалу. В опытах с разными способами генерации и регистрации реактивных соединений получали разные оценки активности мелатонина, включая значительно более слабую реакцию с супероксидом. Пероксинитрит ONOO⁻ при этом не является свободным радикалом, хотя участвует в нитрозативном повреждении и образовании вторичных реактивных продуктов. Научная схема должна различать химические виды, а не объединять их словом «радикалы» с одной одинаковой скоростью удаления.
Часть окислительных превращений раскрывает индольное кольцо мелатонина с образованием AFMK — N¹-ацетил-N²-формил-5-метоксикинурамина. Деформилирование AFMK может приводить к AMK, N¹-ацетил-5-метоксикинурамину, который также участвует в реакциях с азотсодержащими соединениями. В первичных химических опытах AMK реагировал с разными редокс-формами NO, образуя, среди прочего, производное циннолинона. Это более точное описание, чем единая стрелка к «нетоксичному циннолину», якобы завершающему любую реакцию мелатонина.
Идея антиоксидантного каскада означает, что активность может сохраняться у некоторых продуктов превращения. Но фраза «одна молекула гарантированно гасит восемь–десять радикалов» не является универсальной клеточной или клинической стехиометрией. Путь зависит от среды, окислителя, ферментного участия и последующей судьбы продуктов, а отсутствие токсичности нужно устанавливать отдельно. Также неверно противопоставлять мелатонин витаминам C и E как абсолютно безопасную молекулу против неизбежно прооксидантных антиоксидантов: биологический эффект всех этих веществ зависит от условий.
Nrf2, антиоксидантные ферменты и глутатионовый цикл
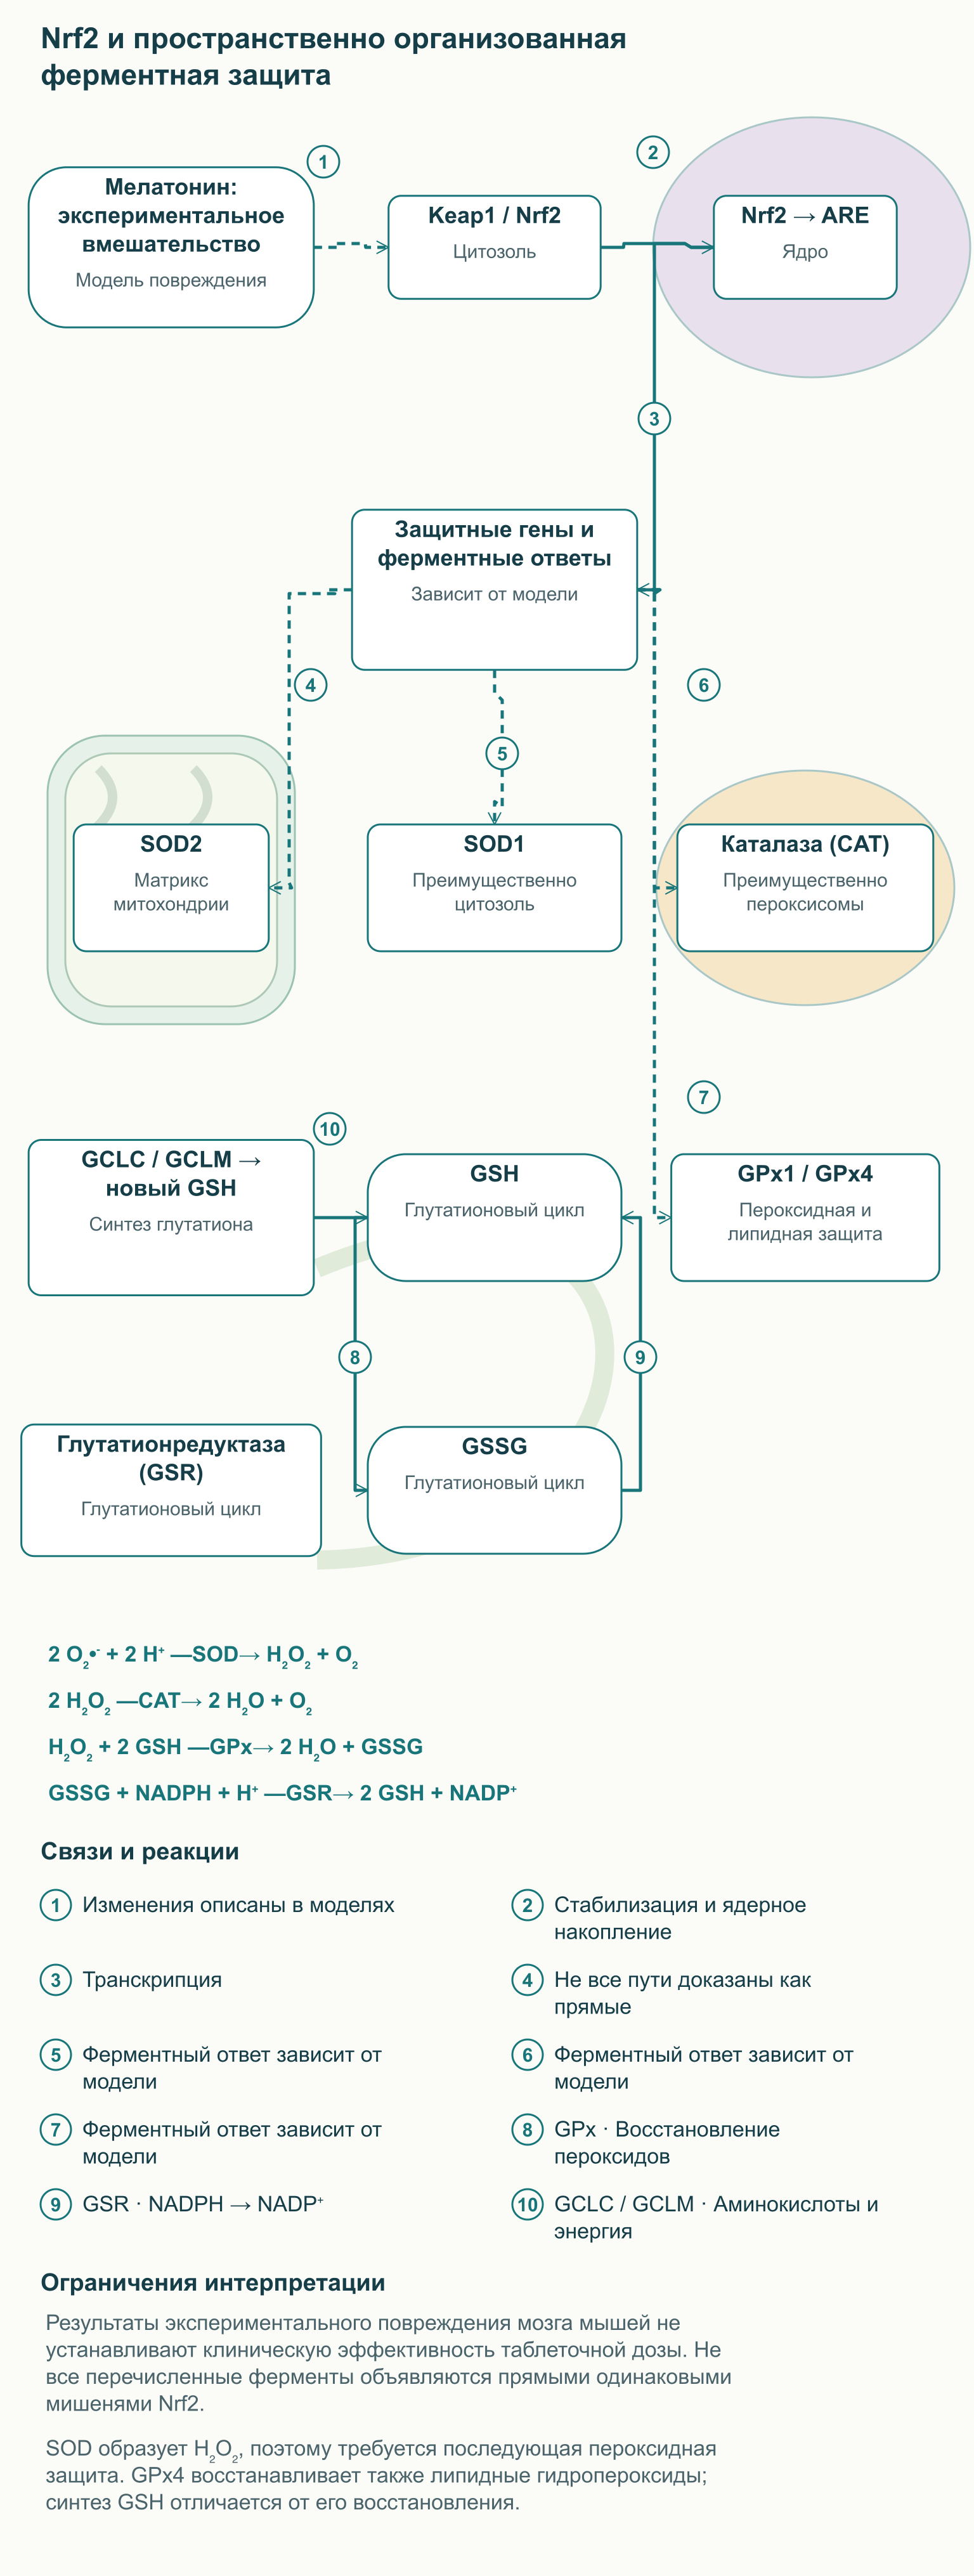
Рецепторная передача сигнала и прямое связывание реактивных соединений не исчерпывают возможных эффектов мелатонина. В экспериментальных моделях исследуют также изменения экспрессии и активности защитных ферментов, в том числе через фактор Nrf2. В базовом состоянии система Keap1 помогает направлять Nrf2 на деградацию; при изменении редокс-сигналов стабильность фактора повышается, и он может накапливаться в ядре. Там Nrf2 совместно с другими белками регулирует гены, содержащие соответствующие элементы ответа ARE.
В опытах Ding и коллег с травматическим повреждением мозга мышей изучали Nrf2-ARE как возможный посредник действия мелатонина. Наблюдались изменения ядерного Nrf2, защитных показателей и ферментных ответов; использование животных с нарушенным Nrf2 помогало выяснять участие этого пути. Это экспериментальная травма и экспериментальное введение, а не клиническое испытание обычной таблетки для предотвращения повреждения мозга. Изменение Nrf2 также не доказывает, что мелатонин всегда напрямую активирует ERK, отделяет Keap1 и одинаково повышает каждый антиоксидантный фермент.
У ферментной защиты есть пространственная организация. SOD2 преимущественно работает в митохондриальном матриксе, тогда как SOD1 находится главным образом в цитозоле и также в отдельных других компартментах; каталаза преимущественно связана с пероксисомами. Супероксиддисмутаза превращает супероксид в H₂O₂: 2 O₂•⁻ + 2 H⁺ → H₂O₂ + O₂. Это устранение одного реактивного соединения с образованием другого, поэтому системе необходим последующий контроль пероксида водорода.
Каталаза осуществляет реакцию 2 H₂O₂ → 2 H₂O + O₂, а глутатионпероксидазы используют восстановленный глутатион GSH. Для пероксида водорода реакцию можно записать как H₂O₂ + 2 GSH → 2 H₂O + GSSG, где GSSG — окисленный дисульфид глутатиона. Глутатионредуктаза восстанавливает его при участии NADPH: GSSG + NADPH + H⁺ → 2 GSH + NADP⁺. GPx4 особенно важна для восстановления липидных гидропероксидов, поэтому её функцию нельзя ограничивать той же картинкой свободного H₂O₂.
Новый GSH образуется в двух ферментных стадиях, первая из которых включает глутамат-цистеинлигазу с каталитической GCLC и регуляторной GCLM. Доступность аминокислот, энергия и восстановительный потенциал определяют работу цикла вместе с экспрессией белков. На схеме подтверждённая архитектура защитной системы отделена от экспериментальных изменений под действием мелатонина. Это позволяет понять возможное усиление защиты, не выдавая все перечисленные гены за одинаково доказанные прямые мишени Nrf2 во всех тканях.
mPTP, наружная мембрана и два разных пути клеточной гибели
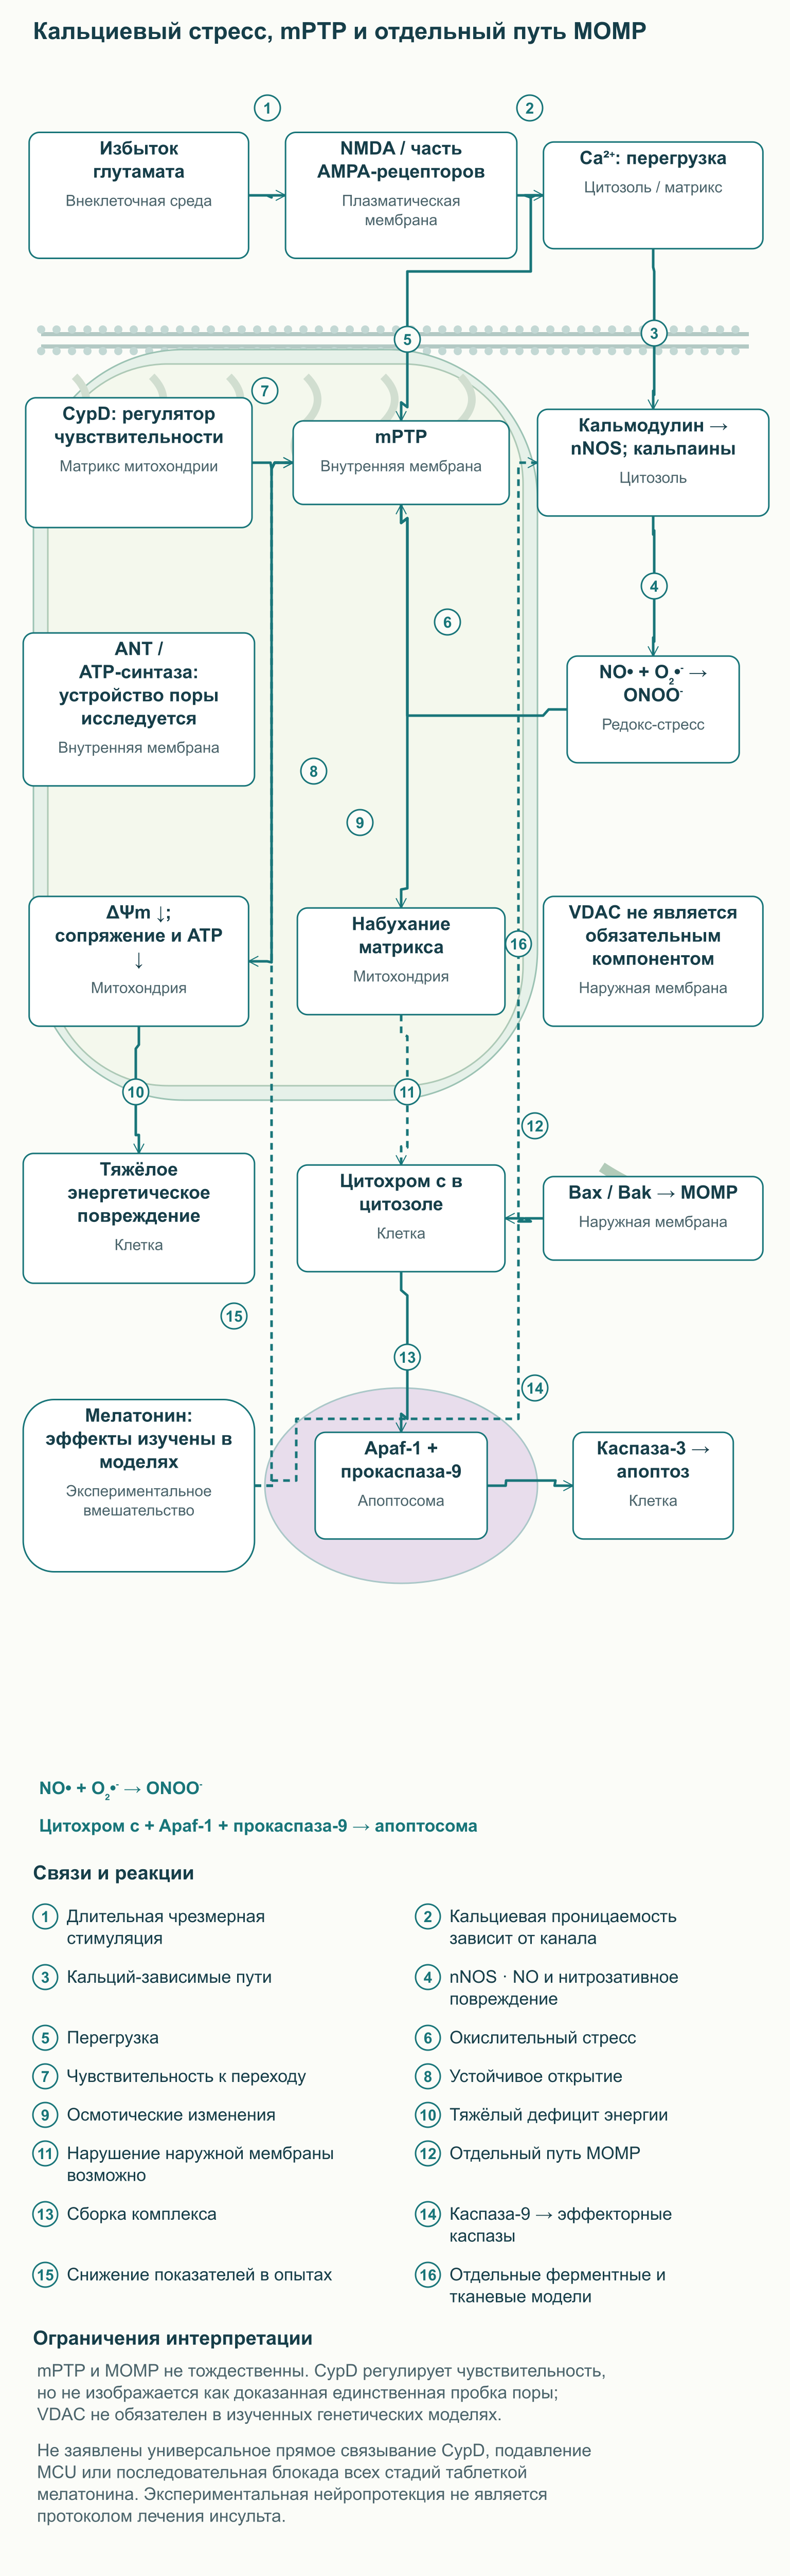
Митохондриальный переход проницаемости связан с увеличением проницаемости внутренней мембраны для небольших растворённых веществ. При длительном открытии mPTP ослабевает мембранный потенциал ΔΨm, нарушается сопряжение дыхания с синтезом ATP, а вода может вызывать набухание матрикса. Переход облегчается перегрузкой кальцием и окислительным стрессом, но не представляет собой единственную линейную реакцию при любом повреждении. Последствия зависят от длительности, энергетического состояния клетки и способности восстановить мембранный градиент. При потере градиента ATP-синтаза в определённых условиях способна работать в обратном направлении, расходуя ATP для переноса протонов вместо его образования.
Циклофилин D, или CypD, — матриксный регулятор чувствительности к переходу проницаемости. Эксперименты с мышами, лишёнными гена Ppif, показали устойчивость митохондрий к определённым кальциевым и окислительным воздействиям и защиту в отдельных моделях ишемии-реперфузии. Однако такие изменения не предотвращали все варианты апоптотической гибели. В частности, результаты подчёркивали отличие CypD-зависимого перехода от некоторых путей, регулируемых белками семейства Bcl-2.
Состав mPTP нельзя представлять как окончательно установленный комплекс из ANT, VDAC, CypD и ATP-синтазы. Роль ANT и ATP-синтазы изучается в разных моделях, а VDAC располагается в наружной мембране; первичные генетические опыты показали, что VDAC не обязателен для исследованных вариантов перехода проницаемости и клеточной гибели. CypD важен для регуляции, но это не равнозначно признанию его единственной структурной пробкой поры. Современная схема показывает исследуемые компоненты и места их расположения, сохраняя неопределённость молекулярного устройства.
Отдельный процесс — MOMP, повышение проницаемости наружной митохондриальной мембраны, которое может запускаться Bax и Bak. Выход цитохрома c в цитозоль способствует сборке апоптосомы с Apaf-1 и прокаспазой-9, после чего активируются эффекторные каспазы, включая каспазу-3. Набухание после устойчивого mPTP тоже может нарушать наружную мембрану, однако эти пути нельзя считать тождественными. При тяжёлом дефиците ATP клеточная гибель может развиваться с преобладанием некротического повреждения, а не обязательно через завершённый каспазный каскад.
В опытах Andrabi и коллег мелатонин уменьшал показатели перехода проницаемости, что поддержало гипотезу его участия в митохондриальной защите. Но этот результат не доказывает прямого физического блокирования CypD или универсального подавления кальциевого унипортера MCU. Наблюдение уменьшенного выхода цитохрома c в другой системе также не раскрывает автоматически все промежуточные белковые взаимодействия. Для клинического переноса нужны исследования, связывающие определённую экспозицию с сохранением функции органа, а не только с отдельным маркером повреждения.
Эксайтотоксичность: от синапса к митохондрии
Глутамат необходим для нормальной передачи сигнала, обучения и пластичности, но чрезмерная длительная активация его рецепторов может повреждать нейрон. При энергетическом нарушении ухудшается обратный захват медиатора, и внеклеточный глутамат накапливается. NMDA-рецепторы способны пропускать Ca²⁺, а участие AMPA-рецепторов зависит, в частности, от их субъединичного состава: не каждый AMPA-канал одинаково проницаем для кальция. Поэтому схема не рисует все глутаматные рецепторы как одинаковые отверстия для безграничного кальциевого потока.
Рост цитозольного Ca²⁺ изменяет работу кальмодулина, протеаз кальпаинов и нейрональной NO-синтазы nNOS. Образующийся NO может реагировать с супероксидом: NO• + O₂•⁻ → ONOO⁻. Митохондриальная перегрузка кальцием и редокс-повреждение мембран затем усиливают энергетический сбой, создавая положительную обратную связь. Повреждение белков и липидов в этой ситуации сочетается с нарушением ионных градиентов и передачей сигналов клеточной гибели.
Мелатонин и некоторые его метаболиты исследовали как модификаторы отдельных звеньев этого процесса. Например, в ферментных опытах и в модели с тканями мозга изучали влияние AMK и мелатонина на активность nNOS, тогда как AFMK не показывал того же эффекта в этой системе. В других моделях оценивали кальциевый обмен, окислительное повреждение, Bax/Bcl-2 и каспазы. Совокупность таких работ объясняет интерес к нейропротекции, но не подтверждает обязательное последовательное блокирование NMDA, кальмодулина, nNOS, апоптосомы и каспазы-3 любой пероральной дозой.
Профессиональная интерпретация должна учитывать время вмешательства и доступность вещества в ткани. При ишемии некоторые процессы развиваются быстро, а высокая концентрация, внесённая непосредственно в клеточную среду, не равнозначна экспозиции после таблетки. Кроме того, уменьшение лабораторного маркера не обязательно означает уменьшение инвалидизации или улучшение выживаемости. Поэтому мелатонин не представляется здесь способом экстренного лечения инсульта, а при признаках инсульта требуется немедленная стандартная медицинская помощь.
Эффект Варбурга и контекст метаболического ответа
Эффект Варбурга означает повышенное образование лактата из глюкозы при доступном кислороде, а не полное отсутствие митохондриального дыхания. Опухолевая клетка может одновременно использовать гликолиз, цикл трикарбоновых кислот и окислительное фосфорилирование, направляя углерод также на синтез клеточных компонентов. Пируват находится в точке разветвления: лактатдегидрогеназа переводит его в лактат, а PDH обеспечивает поступление ацетильной группы в митохондриальный обмен. Изменение PDK способно влиять на это распределение, но не объясняет единолично всю опухолевую биоэнергетику.
В первичных исследованиях опухолевых моделей связь PDK с гипоксическим ответом и продукцией лактата изучали независимо от мелатонина. Работы с мелатонином в клеточных линиях также показывают, что его эффект может быть неодинаковым в здоровой и опухолевой системе. В клетках плоскоклеточного рака головы и шеи исследовали усиление действия цисплатина и облучения, сопровождавшееся повышением митохондриальных ROS, апоптозом и аутофагией. Такой результат особенно наглядно показывает, почему нельзя приписывать мелатонину абсолютное отсутствие прооксидантного действия.
Гипотеза о восстановлении локального синтеза мелатонина через изменение PDK/PDH остаётся отдельным исследовательским вопросом. Чтобы подтвердить всю цепочку, нужно измерять фосфорилирование PDH, поток углерода, доступность ацетил-КоА и образование мелатонина в одной и той же модели. Наблюдаемое снижение лактата или изменение экспрессии PDK не заменяет этих измерений. Тем более нельзя из таких результатов вывести, что мелатонин универсально «обращает эффект Варбурга» и лечит злокачественные опухоли.
Метаболизм макрофагов тоже изменяется при воспалении, но деление на M1 и M2 — упрощённый язык экспериментальных состояний. В ткани существуют разнообразные, меняющиеся во времени программы, зависящие от окружения и повреждения. В культурах макрофагов описывали влияние мелатонина и его метаболитов на отдельные воспалительные ответы, включая COX-2, однако это не означает гарантированного превращения любого провоспалительного макрофага в репаративный. Клиническое назначение должно опираться на измеренный исход у пациента, а не на идеализированный переключатель клеточного фенотипа.
Фармакокинетика: почему IR и PR нельзя смешивать
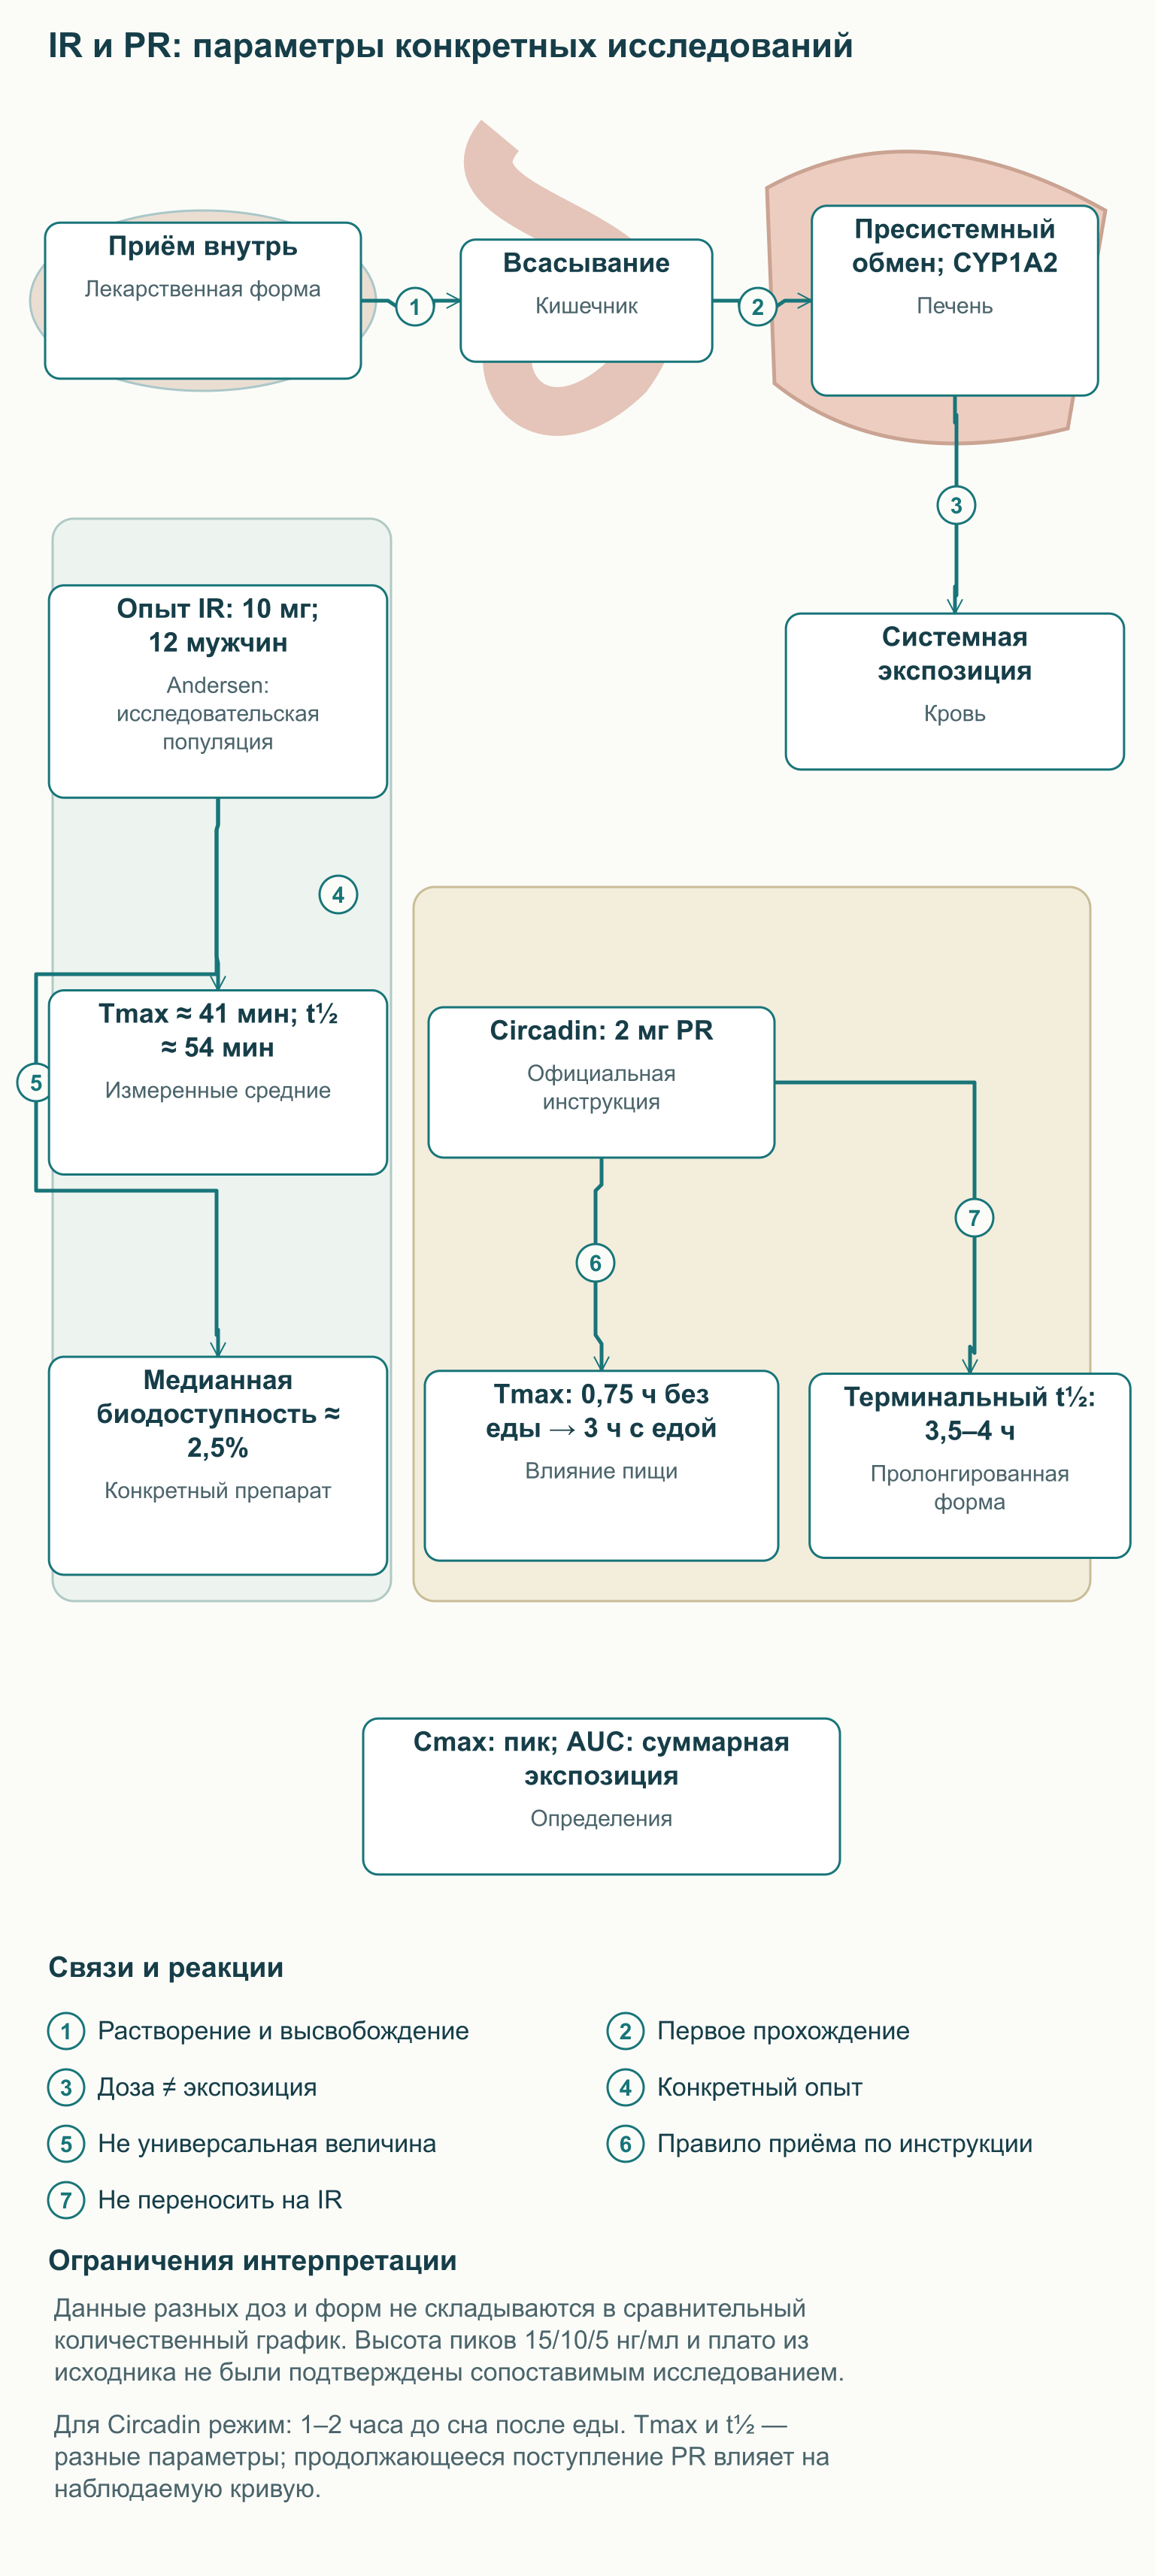
Количество мелатонина в таблетке не равно количеству, достигшему системного кровотока. После приёма внутрь вещество всасывается и проходит выраженный пресистемный метаболизм, а экспозиция зависит от формы, пищи, индивидуального обмена и сопутствующих препаратов. В метаболизме важен CYP1A2; образующийся 6-гидроксимелатонин затем конъюгируется, в том числе с образованием 6-сульфатоксимелатонина aMT6s. Этот мочевой метаболит отражает определённую часть системного обмена, а не непосредственно содержание мелатонина в митохондриальном матриксе.
Форма немедленного высвобождения IR рассчитана на более быстрое поступление, тогда как PR замедляет высвобождение из лекарственной формы. Tmax обозначает время достижения максимальной концентрации, Cmax — сам максимум, а AUC — суммарную экспозицию за наблюдаемый период. Период полувыведения характеризует снижение концентрации в определённых условиях и не тождествен длительности желаемого клинического эффекта. У PR продолжающееся всасывание также влияет на наблюдаемую кривую, поэтому «длинный хвост» нельзя объяснять только медленной работой печени.
В небольшом исследовании Andersen и коллег 12 здоровых мужчин получали по 10 мг мелатонина внутрь и внутривенно в разные дни. Для использованного перорального препарата среднее Tmax составляло около 41 минуты, а средний период полувыведения — около 54 минут; медианная абсолютная биодоступность была приблизительно 2,5%. Это конкретный фармакокинетический опыт с высокой для хронобиологии дозой, а не стандартная экспозиция любой добавки. Исследование также демонстрирует, почему нельзя уверенно рисовать одинаковый плазменный пик для каждого человека после одной и той же таблетки.
Для Circadin 2 мг PR инструкция приводит иной профиль: пища изменяет Tmax примерно с 0,75 до 3 часов, а терминальный период полувыведения составляет около 3,5–4 часов. Эти сведения относятся к конкретной пролонгированной форме и условиям её применения. Их нельзя объединять с опытом 10 мг IR в одну количественную кривую «15 нг/мл против 5 нг/мл» без сопоставимого исследования. На инфографике поэтому представлены измеренные параметры и влияющие факторы, а не придуманный график концентраций с точными, но необоснованными высотами.
Мелатонин, MTNR1B и вечерняя нагрузка глюкозой
Временной сигнал ночи пересекается с регуляцией обмена веществ. MTNR1B кодирует MT2, а мелатониновая сигнализация в панкреатических клетках может влиять на секрецию инсулина через внутриклеточные посредники. Варианты этого гена связаны с различиями показателей углеводного обмена, но генетическая ассоциация не доказывает, что мелатонин всегда вызывает диабет. Между кратковременным ответом на нагрузку, многолетним риском заболевания и эффектом лекарственного приёма существуют отдельные исследовательские вопросы.
В рандомизированном перекрёстном исследовании Garaulet и коллег участвовали 845 человек из испанской популяции с привычно поздним питанием. Каждый проходил два вечерних теста с 75 г глюкозы после восьмичасового голодания: за четыре часа и за один час до привычного времени сна. Это стандартизированная пероральная глюкозная нагрузка, а не сравнение двух полноценных ужинов с белком, жиром и клетчаткой. Поздний тест совпадал с уровнем эндогенного мелатонина примерно в 3,5 раза выше; AUC инсулина была на 6,7% ниже, а AUC глюкозы — на 8,3% выше.
Эффект поздней нагрузки на толерантность к глюкозе был выражен сильнее у носителей G-аллеля варианта MTNR1B. Это поддерживает причинно осмысленную гипотезу о совпадении высокого ночного сигнала с углеводной нагрузкой, но не устанавливает универсальный безопасный интервал в 2,5–3 часа для любых продуктов и форм препарата. В самом опыте не назначали таблетку мелатонина и не измеряли возникновение диабета после длительного лечения. Поэтому результат не следует превращать в запрет всех поздних приёмов пищи или в обязательное генетическое тестирование каждого пользователя.
Практически специалисту полезно обсудить привычное время сна и еды, наличие диабета или предиабета и реальную цель применения мелатонина. Если препарат уже назначен, режим питания и мониторинг гликемии выбирают в контексте заболевания и конкретной лекарственной формы. Правило Circadin принимать после еды нельзя механически отменять на основании опыта с эндогенным мелатонином и OGTT. При необходимости изменения лечения или расписания должны согласовываться как единая стратегия, а не складываться из противоречащих друг другу общих советов.
Лекарственные взаимодействия и безопасность
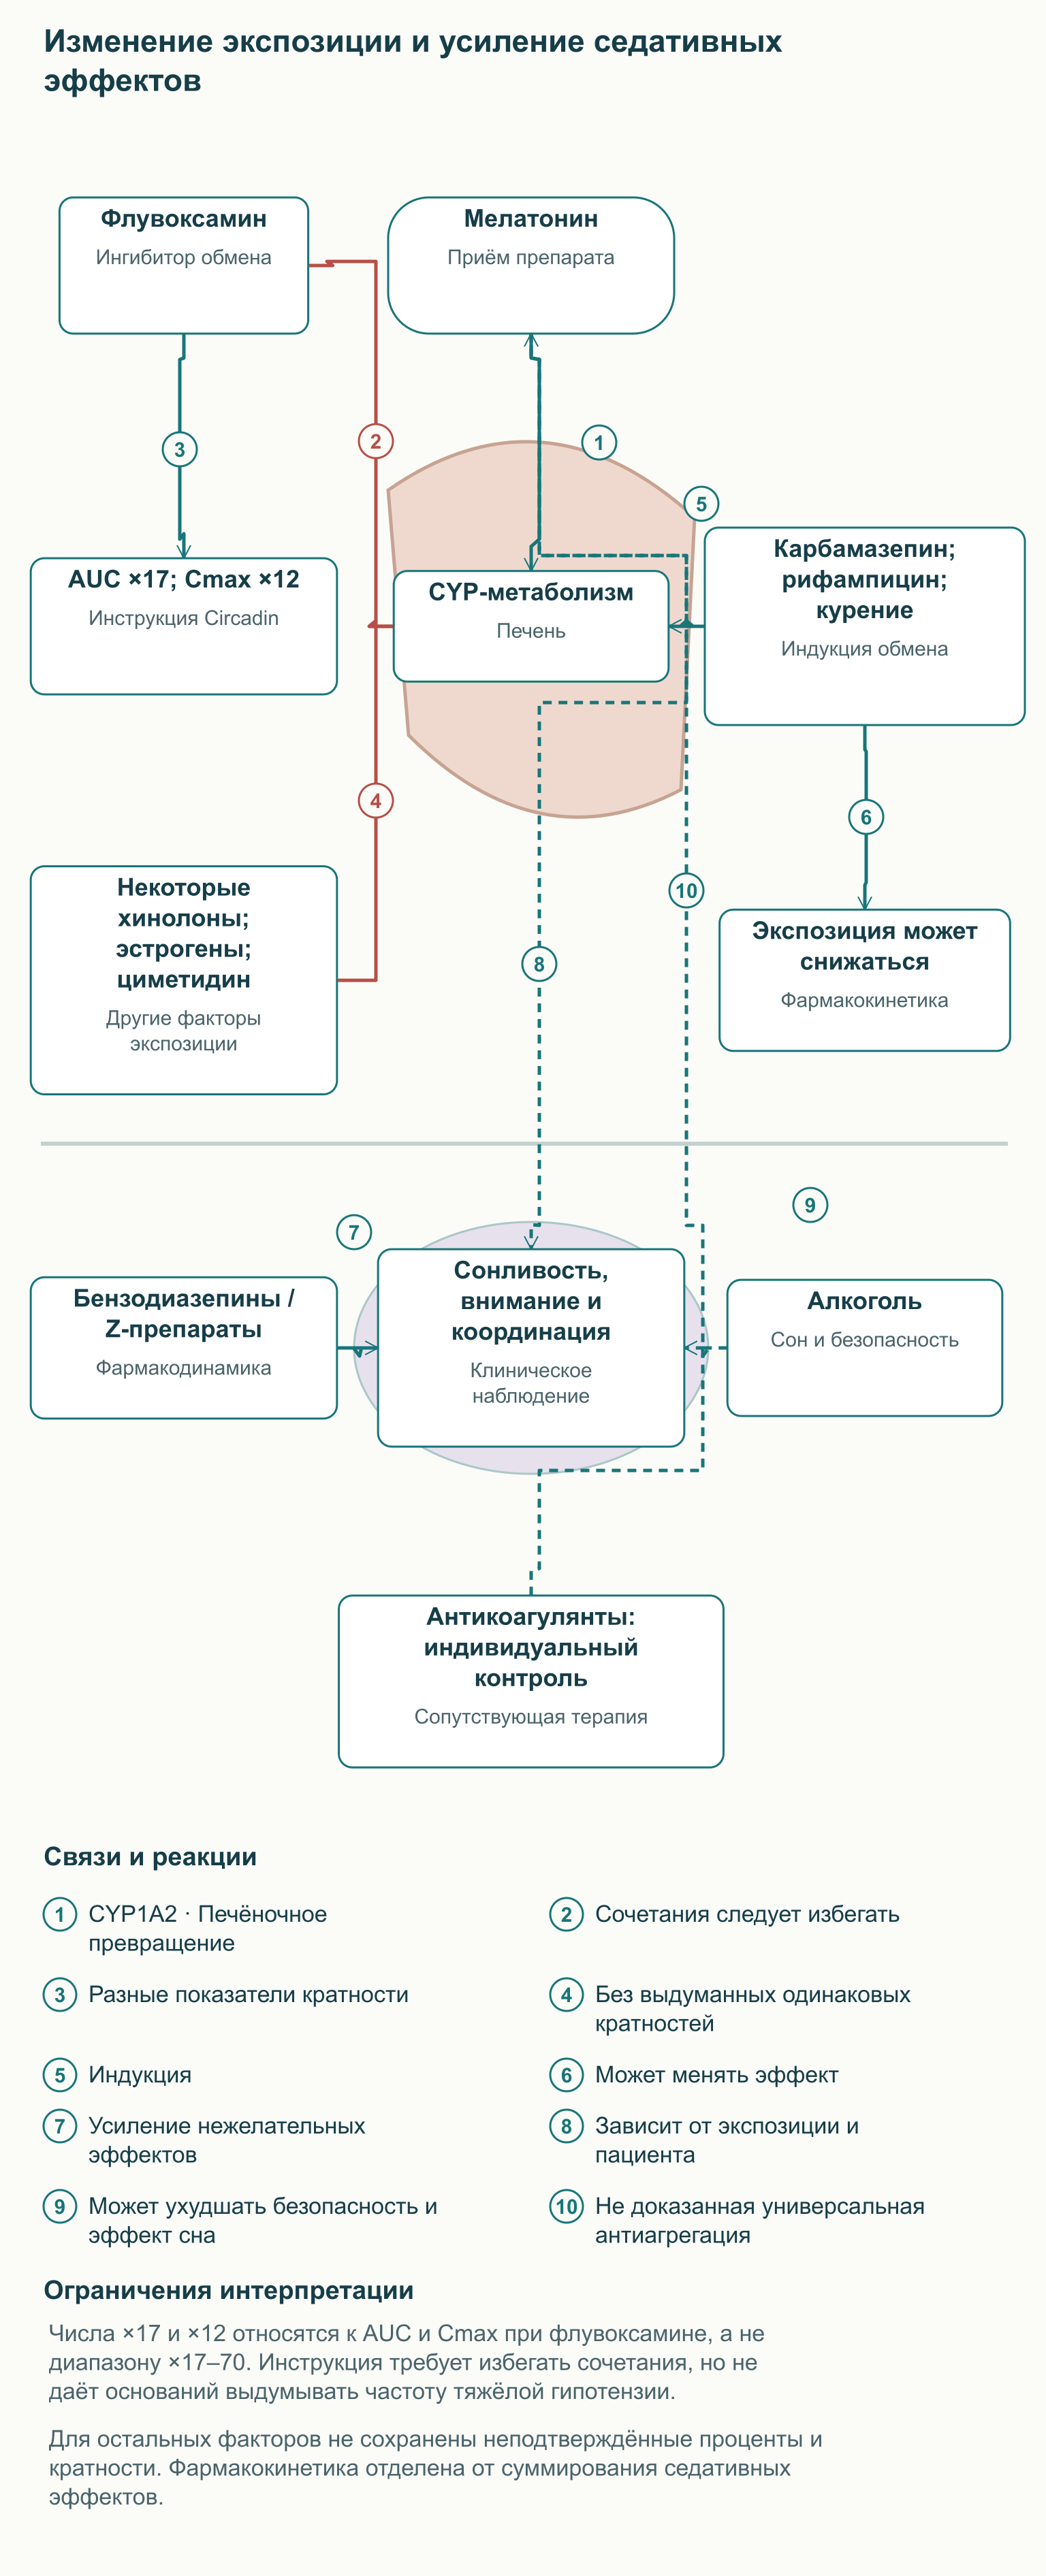
Флувоксамин — важный пример фармакокинетического взаимодействия. Согласно инструкции Circadin, он повышает AUC мелатонина примерно в 17 раз, а Cmax — в 12 раз; такого сочетания следует избегать. Это точные разные показатели, поэтому их нельзя объединять в диапазон «17–70 раз» или сопровождать вымышленной частотой тяжёлой гипотензии. Значительное изменение экспозиции требует внимания даже тогда, когда исходная таблеточная доза кажется небольшой.
Другие ингибиторы метаболизма, включая некоторые хинолоны, могут увеличивать экспозицию, а эстрогены и циметидин также упоминаются в инструкции как факторы взаимодействия. Напротив, карбамазепин, рифампицин и курение могут снижать уровень через индукцию ферментных систем. Для каждой из этих ситуаций нельзя придумывать одинаковую кратность изменения без отдельного исследования. Начало или прекращение курения тоже может менять метаболический контекст, поэтому стабильная привычная доза не всегда означает стабильную экспозицию.
Фармакодинамическое взаимодействие отличается от изменения концентрации. Бензодиазепины и некоторые снотворные Z-группы могут усиливать нарушения внимания, координации и сонливость при сочетании с мелатонином; алкоголь способен ухудшать ожидаемый эффект сна и увеличивать небезопасность поведения. Для варфарина и других препаратов, требующих точного контроля, сочетание обсуждают с лечащим специалистом, но мелатонин не следует объявлять доказанным универсальным антиагрегантом. Причина осторожности и план наблюдения должны быть конкретными для лекарства и пациента.
Возможные нежелательные явления включают сонливость, головокружение и головную боль, а после приёма важно учитывать способность безопасно управлять транспортом. Для Circadin ограничено применение при заболеваниях печени, требуется осторожность при почечной патологии, а недостаток данных влияет на рекомендации при аутоиммунных заболеваниях. Эта инструкция также не рекомендует применение при беременности и грудном вскармливании из-за недостаточности соответствующих данных. Сведения об одной форме не превращаются в доказательство одинаковой безопасности всех высоких доз, всех добавок и всех возрастных групп.
Качество продукта имеет практическое значение, особенно если речь идёт о добавке с небольшим заявленным содержанием. В анализе Erland и Saxena коммерческих продуктов обнаружили отклонения содержания мелатонина от этикетки от −83% до +478%, а в части образцов — серотонин. Это исследование конкретной выборки рынка, а не утверждение, что любой современный продукт обязательно имеет такое отклонение. Но оно показывает, почему зарегистрированная лекарственная форма и надёжность производства важны не меньше, чем расчёт желаемых десятых долей миллиграмма.
Время приёма: циркадное расстройство, бессонница и джетлаг
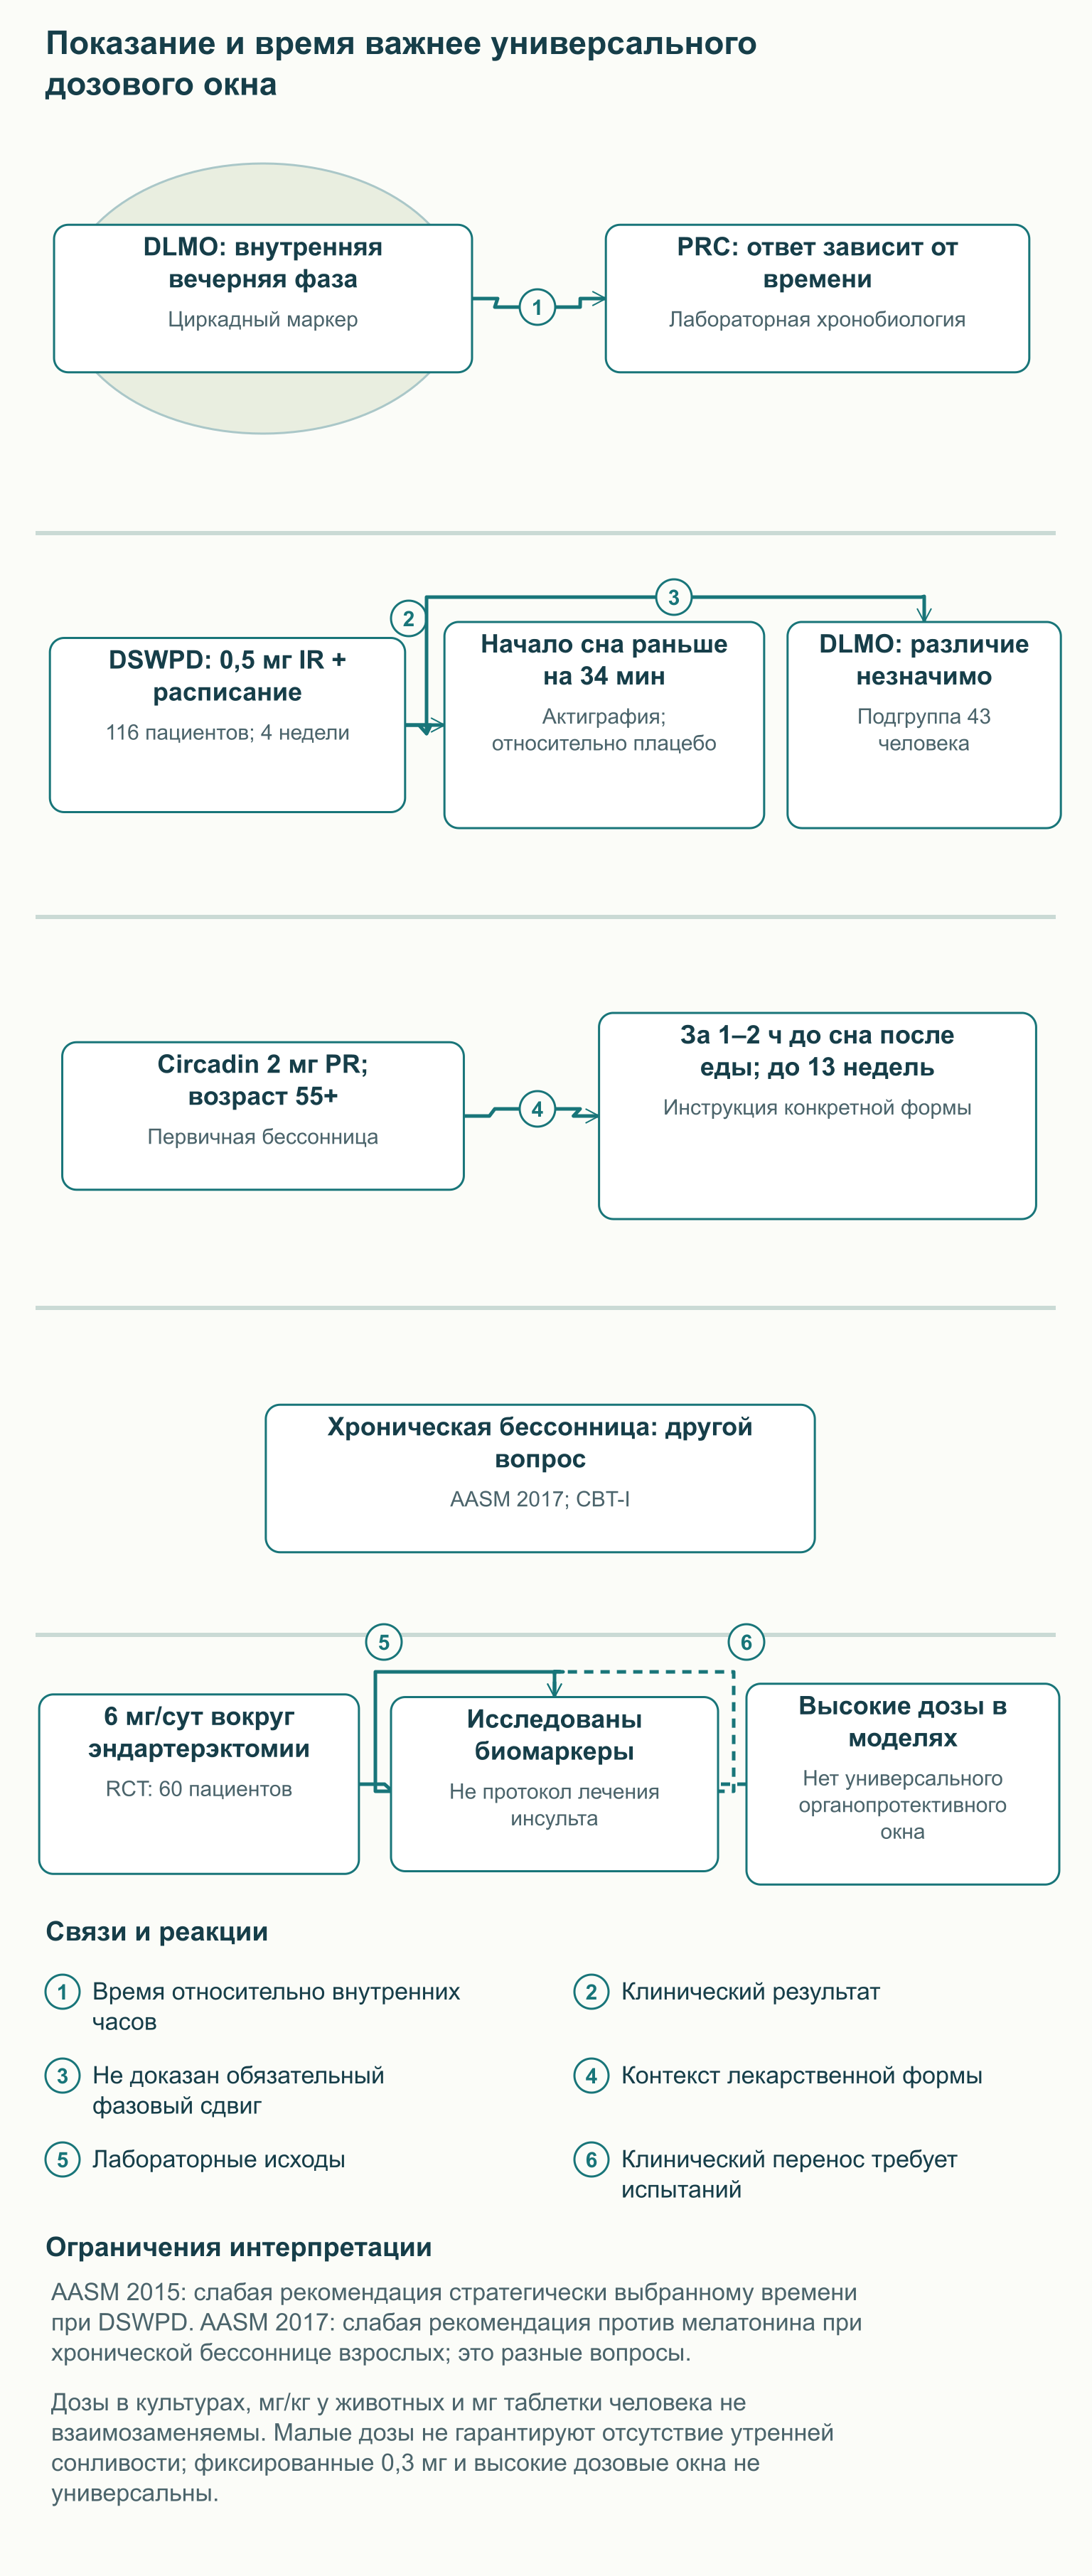
Хронобиотик изменяет фазу биологических часов, тогда как непосредственный эффект на засыпание — другой результат. DLMO, начало вечернего повышения мелатонина при тусклом освещении, служит одним из маркеров внутренней фазы. Кривая фазового ответа PRC показывает, как направление и величина сдвига зависят от момента введения относительно этой фазы. Поэтому одинаковая доза в разное биологическое время может действовать по-разному, а фиксированное назначение «в 22:00 всем» не является полноценным хронобиологическим протоколом.
В человеческом лабораторном исследовании Burgess и коллег сравнивали фазовые ответы на три последовательных дня приёма 0,5 мг с ранее полученными по тому же протоколу данными для 3 мг. Обе дозы могли сдвигать фазу, но оптимальное время относительно эндогенного ритма различалось. Этот результат объясняет, почему увеличение дозы не заменяет выбора времени. Он также не означает, что каждый пациент должен получать 0,3 мг ровно за четыре–пять часов до сна: время относительно привычного отбоя и время относительно DLMO — разные ориентиры.
При расстройстве задержки фазы сна и бодрствования DSWPD человек обычно способен нормально спать по своему позднему расписанию, но испытывает трудности при попытке заснуть и проснуться раньше. AASM в руководстве 2015 года дала слабую рекомендацию стратегически рассчитанному времени мелатонина для соответствующих пациентов. Слабая рекомендация означает ограниченную уверенность и необходимость учитывать обстоятельства, а не отсутствие физиологического смысла. Она не устанавливает одну универсальную дозу и не распространяется автоматически на любую жалобу «не могу уснуть».
В испытании Sletten участвовали 116 пациентов с DSWPD и подтверждённым запаздыванием мелатонинового ритма относительно желаемого сна. Они получали 0,5 мг быстрого высвобождения или плацебо за один час до желаемого времени отхода ко сну в течение четырёх недель, вместе с поведенческим расписанием. По актиграфии начало сна было на 34 минуты раньше относительно плацебо; 95%-й доверительный интервал соответствовал примерно 8–60 минутам более раннего начала. Актиграфия оценивает сон по двигательной активности и не является полисомнографией, поэтому обозначать этот результат как PSG неверно.
В подгруппе из 43 участников различие изменения DLMO между группами не было статистически значимым. Следовательно, испытание поддерживает клинический эффект данного комбинированного режима, но не доказывает выраженный фазовый сдвиг у каждого пациента. Часть пользы могла быть связана с облегчением засыпания в выбранное время, а поведенческое расписание входило в обе группы. Длительная эффективность и безопасность за пределами исследованных четырёх недель этой работой не устанавливались.
При хронической бессоннице взрослых клинический вопрос иной: сон остаётся затруднённым при достаточной возможности и подходящем расписании. Руководство AASM 2017 года содержит слабую рекомендацию против мелатонина для лечения нарушений засыпания или поддержания сна в этом контексте. Это не отменяет рекомендацию для DSWPD и не является запретом всех зарегистрированных форм во всех странах. Для хронической бессонницы AASM отдельно рекомендует многокомпонентную когнитивно-поведенческую терапию CBT-I, которая работает с поведением и устойчивыми механизмами поддержания расстройства.
Для джетлага важны направление перелёта, число часовых поясов, местное расписание и световой режим. Мелатонин исследовался в этом контексте, но время приёма нельзя свести к одному часовому значению независимо от маршрута. Неподходящее время может давать нежелательную сонливость или мешать нужному направлению адаптации. Практическая схема поэтому должна учитывать внутреннее время и планируемый режим в пункте назначения, а не только надпись «для путешествий» на упаковке.
Клинические дозы и исследовательская органопротекция
Малые дозы мелатонина могут создавать значимый сигнальный эффект, поскольку рецепторная система чувствительна к низким концентрациям. Однако термин «физиологическая доза» зависит от возраста, формы и индивидуальной фармакокинетики. В небольшом исследовании Zhdanova у людей старше 50 лет сравнивали 0,1, 0,3 и 3 мг за 30 минут до сна в недельных периодах с плацебо; было по 15 участников с нормальным сном и сниженной эффективностью сна. Полисомнография показала улучшение эффективности сна у соответствующей группы, а 3 мг могли поддерживать повышенный уровень мелатонина в дневные часы.
Этот опыт объясняет интерес к небольшим дозам, но не делает 0,3 мг обязательным лечением любого нарушения сна. Его популяция и длительность отличаются от исследования DSWPD и от исследований пролонгированной формы. Для Circadin зарегистрирован режим 2 мг PR при первичной бессоннице с плохим качеством сна у пациентов от 55 лет: один–два часа до сна после еды, до 13 недель. Такой режим относится к конкретному препарату и показанию; произвольная таблетка 2 мг немедленного высвобождения не становится его эквивалентом.
Высокие дозы в исследованиях клеточной или органной защиты отвечают на другую задачу, но между «хронобиотическим» и «органопротективным» диапазонами нет доказанной универсальной границы. Содержание мелатонина в крови не устанавливает автоматически концентрацию у митохондриальной мишени. Миллиграммы на килограмм у мыши, микромолярная концентрация в культуре и миллиграммы в таблетке человека не являются взаимозаменяемыми единицами экспозиции. Предположение о десенситизации рецепторов при любых 3–10 мг также не следует выдавать за клиническое правило без подходящих данных.
В исследовании Zhao нейропротективную гипотезу изучали одновременно в животной модели ишемии-реперфузии и в небольшом рандомизированном испытании 60 пациентов после каротидной эндартерэктомии. В человеческой части применяли 6 мг в сутки от трёх дней до операции до трёх дней после неё и оценивали воспалительные и окислительные биомаркеры. Это важный пример перехода от модели к человеку, но биомаркеры вокруг плановой сосудистой операции не равнозначны доказательству лечения острого инсульта. По этой работе нельзя назначать всем пациентам 10–20 мг для предотвращения неврологической инвалидизации.
В мышиных моделях сепсиса изучали также инфламмасому NLRP3 — белковую систему, участвующую в созревании воспалительных сигналов. Сравнение обычных и генетически изменённых животных позволяет выяснять вклад NLRP3 и NF-κB в ответ ткани на повреждение и введение мелатонина. В таких опытах участие функционального RORα в отдельном транскрипционном ответе не доказывает прямого связывания мелатонина с этим ядерным белком. Изменения этих путей дают исследовательское обоснование, но не устанавливают стандартную дозу для сепсиса, ARDS или так называемого цитокинового шторма у человека.
То же ограничение касается онкологии, сепсиса и других направлений, где мелатонин исследуется как дополнительное вмешательство. Дозы 3–20, 10–40 или 50 мг из разнородных публикаций не образуют единого доказательного протокола «метаболической защиты». Для такого протокола необходимы данные о конкретном заболевании, форме, сочетании со стандартным лечением, клинических исходах и нежелательных явлениях. Наличие убедительных клеточных механизмов поддерживает исследования, но не заменяет их результатов и не оправдывает отказа от эффективной терапии.
Формы доставки и выбор продукта
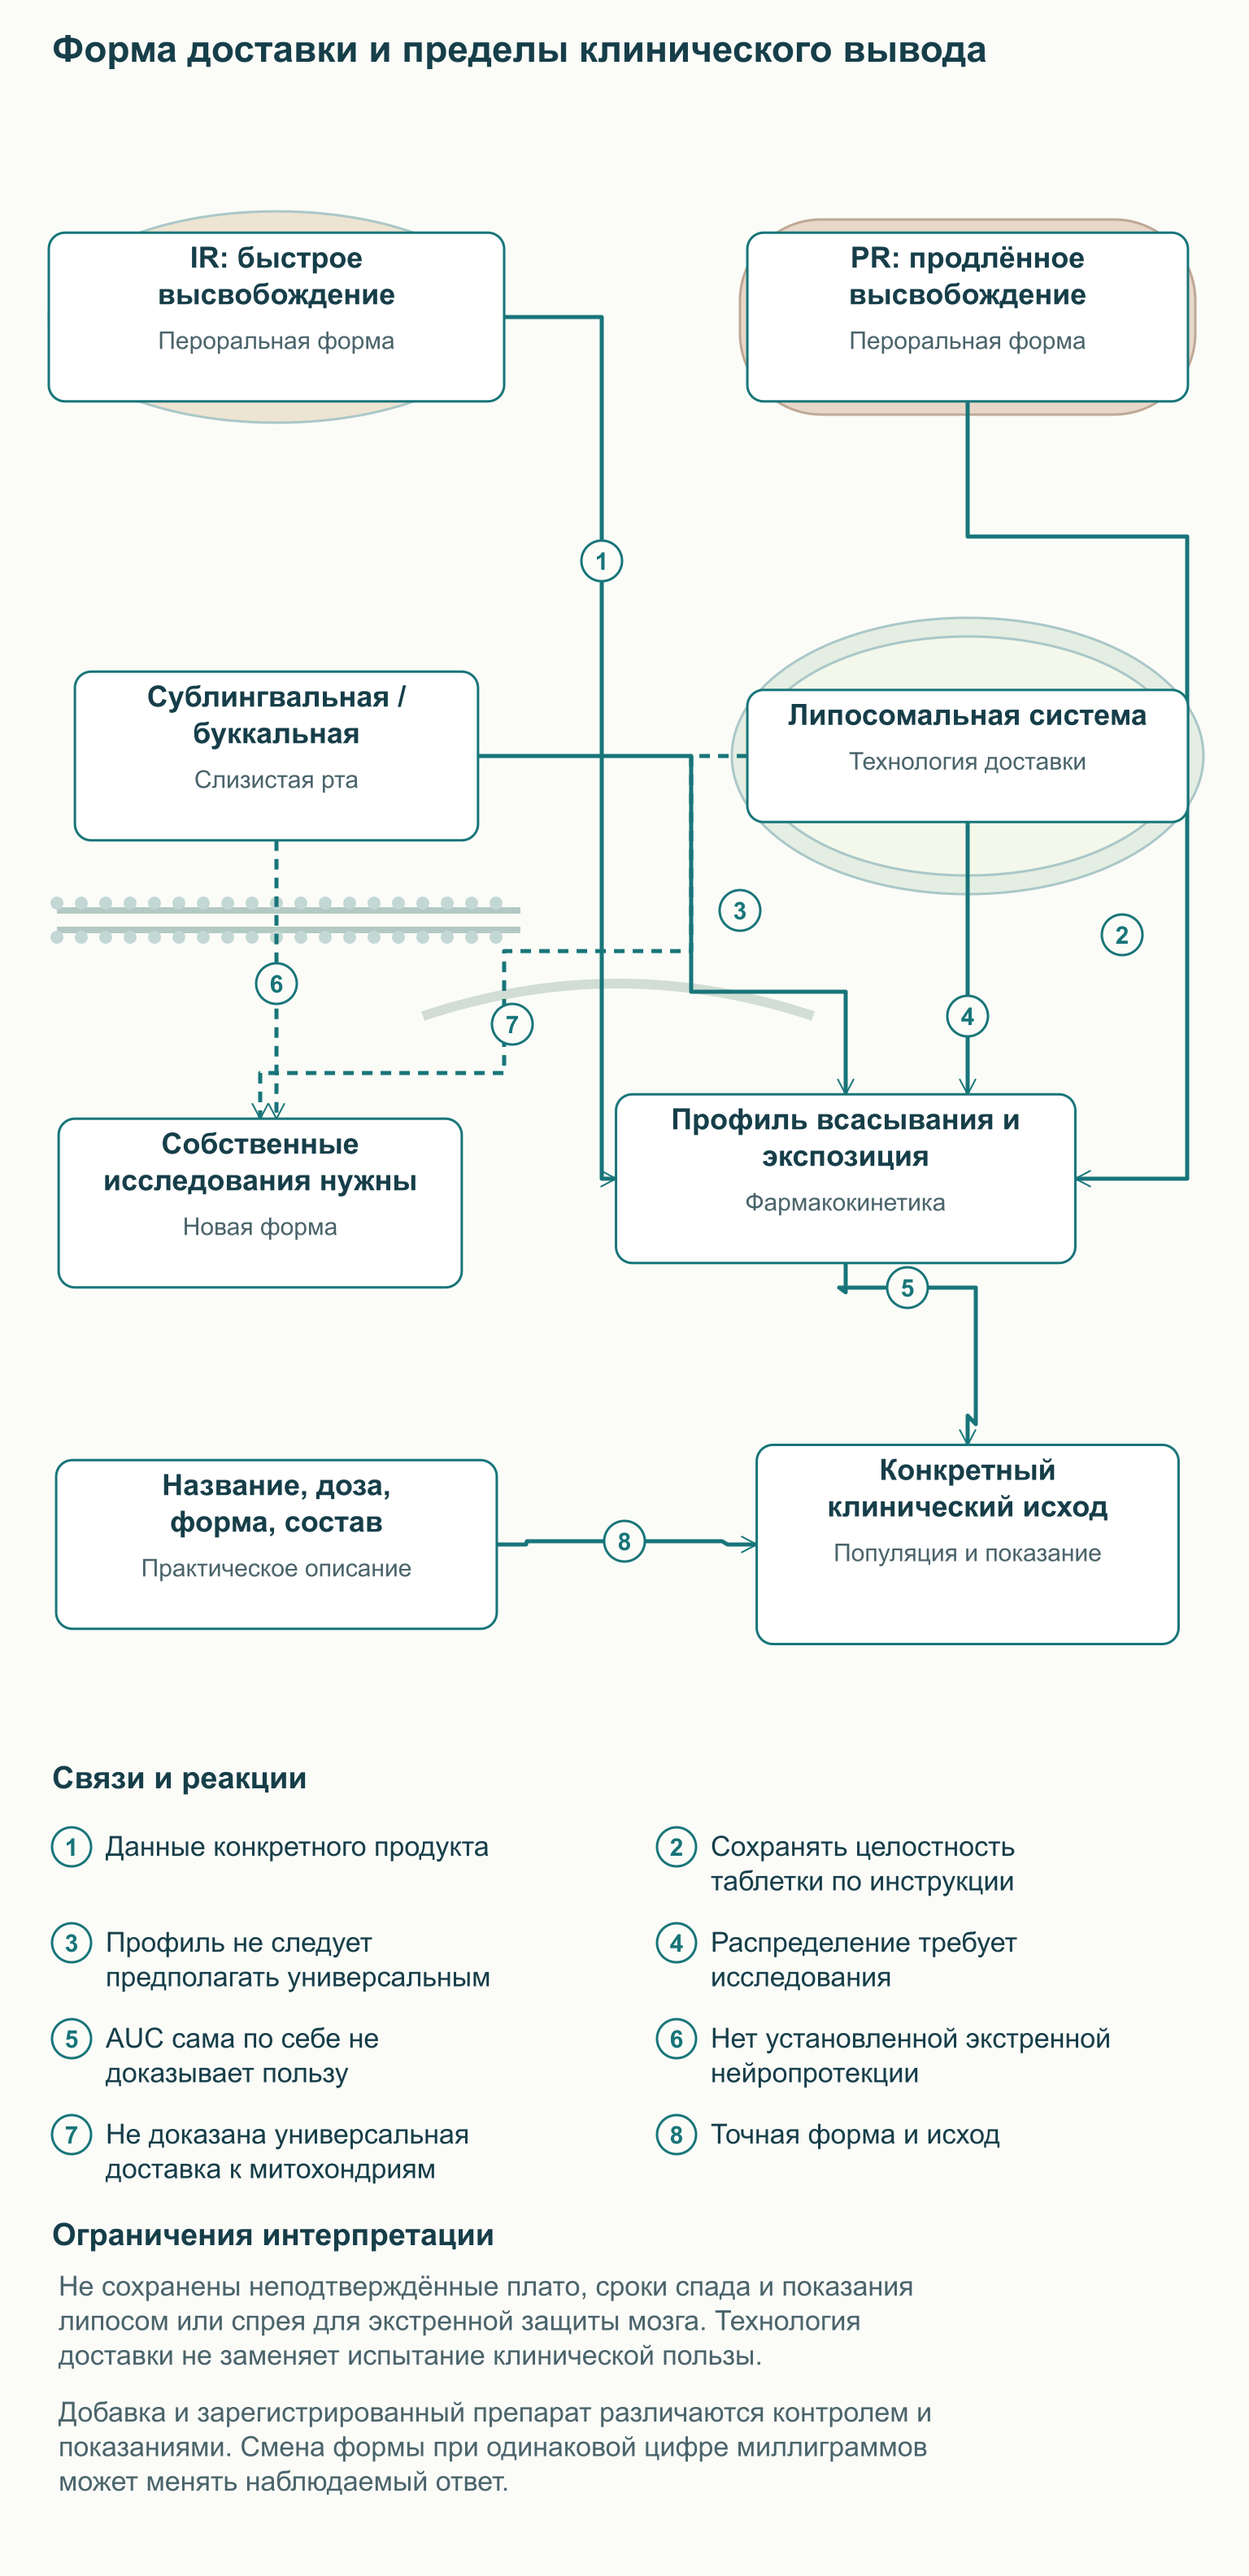
У лекарственной формы есть функция: управлять скоростью поступления и воспроизводимостью экспозиции. Для IR и PR важно знать не только дозу, но и правила приёма, влияние пищи и возможность изменения таблетки. Пролонгированный препарат обычно нельзя произвольно измельчать, если это нарушает предусмотренное высвобождение. Если нужен мелатонин с определённым профилем, выбор формы должен исходить из клинической цели, а не из предположения, что более быстрый пик обязательно полезнее.
Форма
Что она меняет
Что требуется для клинического вывода
Пероральная IR
Более быстрое высвобождение; профиль зависит от продукта
Исследование нужной популяции, времени и исхода
Пероральная PR
Более длительное поступление из лекарственной формы
Данные конкретного препарата и соблюдение инструкции
Сублингвальная или буккальная
Может менять путь всасывания и пресистемный обмен
Собственная фармакокинетика; нельзя обещать экстренную нейропротекцию
Липосомальная и другие системы
Потенциально меняет распределение и стабильность
Исследования безопасности, доставки и клинической пользы
Сублингвальный спрей или липосомальная упаковка не доказывают достижения мозга в защитной концентрации и не превращают продукт в средство экстренной помощи. Для этого нужны прямые данные о распределении, а затем исследования нужного клинического исхода. Технологическая новизна может быть интересна, но отдельные этапы разработки нельзя пропускать благодаря маркетинговому слову «биодоступный». Даже заметное увеличение AUC само по себе не устанавливает лучший баланс пользы и нежелательных эффектов.
Выбор между добавкой и лекарственным препаратом зависит также от местного регулирования и доступных показаний. Для специалиста важно записывать точное название, количество мелатонина, характер высвобождения и сопутствующие компоненты. В комбинации с растительными экстрактами или другими седативными веществами эффекты уже нельзя приписывать одному мелатонину. Смена продукта при той же надписи «2 мг» способна изменить наблюдаемый ответ, поэтому при оценке результата необходимо учитывать и форму, и происхождение препарата.
Лабораторные показатели и практическое наблюдение
DLMO полезен, когда требуется уточнить циркадную фазу, но его определение требует подходящего протокола. Образцы слюны или крови собирают серийно при контролируемом тусклом освещении, начиная достаточно рано относительно ожидаемого повышения. Частота забора, допустимая освещённость и порог начала выбираются по методу и задаче лаборатории. Универсальное окно «19–23 часа раз в час» может пропустить ритм человека с выраженной задержкой, а недавний приём экзогенного мелатонина способен мешать интерпретации.
Мочевой aMT6s используют как показатель метаболизма мелатонина за определённый интервал. Результат зависит от времени сбора, полноты образца и способа нормирования, включая поправку на креатинин в подходящих протоколах. Он не показывает непосредственно, сколько вещества синтезировалось внутри нейрональной митохондрии. По низкому или высокому показателю нельзя диагностировать универсальный «митохондриальный дефицит мелатонина» и назначать органопротективную дозу.
Малоновый диальдегид, 8-OHdG и соотношение GSH/GSSG применяются в исследовательских вопросах об окислительном повреждении и редокс-состоянии. Разные методы дают неодинаковую специфичность, а обработка образца сама может менять измеряемую величину. Эти показатели не образуют обязательную панель наблюдения для обычного применения мелатонина при расстройстве сна. Глюкозу и HbA1c оценивают по метаболическим показаниям, а не потому, что любому человеку после первой таблетки необходим расширенный лабораторный контроль.
Практическая работа начинается с описания жалобы: желаемого и реального времени сна, ночных пробуждений, дневной сонливости, света, сменной работы и принимаемых лекарств. Дневник сна помогает отличить устойчиво поздний ритм от нерегулярного расписания и оценить изменения без замены одного показателя другим. При храпе с остановками дыхания, выраженной сонливости, депрессивных симптомах или других признаках заболевания требуется отдельная диагностическая оценка. Мелатонин не должен скрывать причину, которую можно и нужно лечить иначе.
До начала применения полезно определить один или несколько конкретных исходов: время засыпания, способность просыпаться по нужному расписанию, качество сна и дневное функционирование. Затем оценивают соблюдение времени, форму препарата, переносимость и связь изменений с поведенческим режимом. Если результата нет, механистическое обещание «защиты митохондрий» не служит основанием бесконечно увеличивать дозу. Согласованное решение о продолжении, изменении или прекращении приёма опирается на показание и наблюдаемый ответ, сохраняя различие между интересной биологией и доказанной клинической пользой.
Частые вопросы
Мелатонин действительно образуется только в эпифизе?
Нет, мелатонин и ферментные системы обнаружены вне эпифиза, включая тканевые и митохондриальные модели. Однако данные не позволяют подсчитать универсальные доли 5% и 95% для человека. Циркулирующий ночной сигнал и локальные измерения требуют разных методов интерпретации.
Можно ли по анализу крови определить митохондриальный запас мелатонина?
Анализ крови или слюны характеризует доступный для измерения системный сигнал в конкретное время. Мочевой aMT6s отражает часть обмена за период сбора. Ни один из этих показателей непосредственно не измеряет мелатонин в матриксе нейрональной митохондрии.
Почему при задержке фазы сна важнее время, а не увеличение дозы?
Фазовый ответ зависит от момента воздействия относительно внутренних часов, поэтому одна доза в разное время может давать разные сдвиги. При DSWPD используют стратегически рассчитанное время в сочетании с расписанием и световым режимом. Оно не сводится к одному часу приёма для всех людей.
Чем отличаются 0,5 мг IR и 2 мг PR?
Они различаются не только количеством вещества, но и высвобождением, экспозицией и исследованными показаниями. Режим 0,5 мг в испытании DSWPD нельзя подменять инструкцией Circadin 2 мг PR для пациентов от 55 лет. Форму и время выбирают по клинической цели и данным конкретного продукта.
Нужно ли всем выдерживать три часа между едой и мелатонином?
Универсальный интервал не установлен. Исследование 845 участников сравнивало два времени 75-граммовой глюкозной нагрузки при разном уровне эндогенного мелатонина, а не любой ужин и любой препарат. При диабете и назначенной терапии режим согласуют индивидуально, учитывая также инструкцию лекарственной формы.
Можно ли применять мелатонин для экстренной защиты мозга?
Экспериментальные эффекты на редокс-пути, рецепторы и клеточную гибель не устанавливают эффективность таблетки или спрея при остром инсульте. Небольшие исследования биомаркеров вокруг операций не заменяют испытаний функциональных исходов. Признаки инсульта требуют немедленной стандартной медицинской помощи.
Какие сочетания особенно важны?
Флувоксамин существенно повышает экспозицию мелатонина, и инструкция Circadin рекомендует избегать сочетания. Седативные препараты могут усиливать сонливость и нарушения координации. Индукторы и ингибиторы ферментного обмена, антикоагулянты и сопутствующие заболевания требуют обсуждения конкретного режима.
Обязательно ли сдавать антиоксидантную панель при приёме?
Для обычного применения при расстройствах сна обязательная панель MDA, 8-OHdG и GSH/GSSG не установлена. Эти показатели чаще отвечают на исследовательские вопросы и зависят от метода. Наблюдение прежде всего оценивает показание, время сна, дневное функционирование, переносимость и клинически обоснованные показатели.