
Мелатонін: мітохондрії, циркадні рецептори й клінічне застосування
Докладний розбір синтезу мелатоніну, MT1/MT2 і мітохондріального сигналу, редокс-хімії, загибелі клітини та клінічної хронобіології. Людські дослідження сну й глюкозного обміну відокремлено від моделей нейропротекції; пояснено форми, взаємодії та межі лабораторних показників.
Мелатонін відомий насамперед як сигнал біологічної ночі, але його біологія не закінчується епіфізом і засинанням. N-ацетил-5-метокситриптамін виявляють у різних тканинах, а в експериментальних системах він бере участь у хімічних реакціях з активними формами кисню й азоту, змінює клітинні сигнали та роботу мітохондрій. Ці напрями пов’язані між собою, однак відповідають на різні запитання: де утворюється молекула, з якою мішенню вона взаємодіє та чи покращує її приймання конкретний результат у людини. Для фахівця особливо важливо не підміняти останнє запитання переконливим зображенням перших двох.
У цій статті шлях від триптофану до мелатоніну поєднано з будовою мембран, рецепторною передачею сигналу, редокс-хімією та клінічною хронобіологією. Мітохондріальні досліди тут розглядаються у власному масштабі, а дослідження сну й обміну глюкози — із зазначенням форми, дози, популяції та способу вимірювання. Такий підхід дозволяє пояснити потенційний захист клітини, не перетворюючи його на непідтверджений протокол лікування інсульту, пухлини або «мітохондріального дефіциту». Практична цінність мелатоніну визначається показанням, часом введення та лікарською формою, а не кількістю перелічених молекулярних механізмів.
Еволюційна гіпотеза й сучасна функція нічного сигналу
Мітохондрії походять від бактеріального предка, і їхній дихальний ланцюг зберігає зв’язок із цією еволюційною історією. Перенесення електронів на кисень забезпечує отримання енергії, але частина електронів може спрямовуватися на утворення супероксиду, тому клітині потрібні системи контролю окиснювальних реакцій. Поширення мелатоніну за межами хребетних робить правдоподібною гіпотезу про давню хімічну захисну функцію цієї молекули. Однак виявлення речовини в сучасних організмах саме по собі не датує появу її синтезу й не показує, якою була її перша біологічна функція.
Тому історія про виникнення мелатоніну саме 2,5 мільярда років тому та подальшу появу ендокринної функції саме 500 мільйонів років тому надто визначена. Для такого календаря потрібні незалежні еволюційні дані, а не перенесення віку кисневих змін Землі на конкретну ферментну систему. Обережніша реконструкція пов’язує давню редокс-хімію індольних сполук із подальшою спеціалізацією сигнальних шляхів у тварин. На схемі ці події подано як гіпотезу функціонального розвитку, без непідтверджених дат і без твердження, що в усіх предків не було жодних рецепторних мішеней.
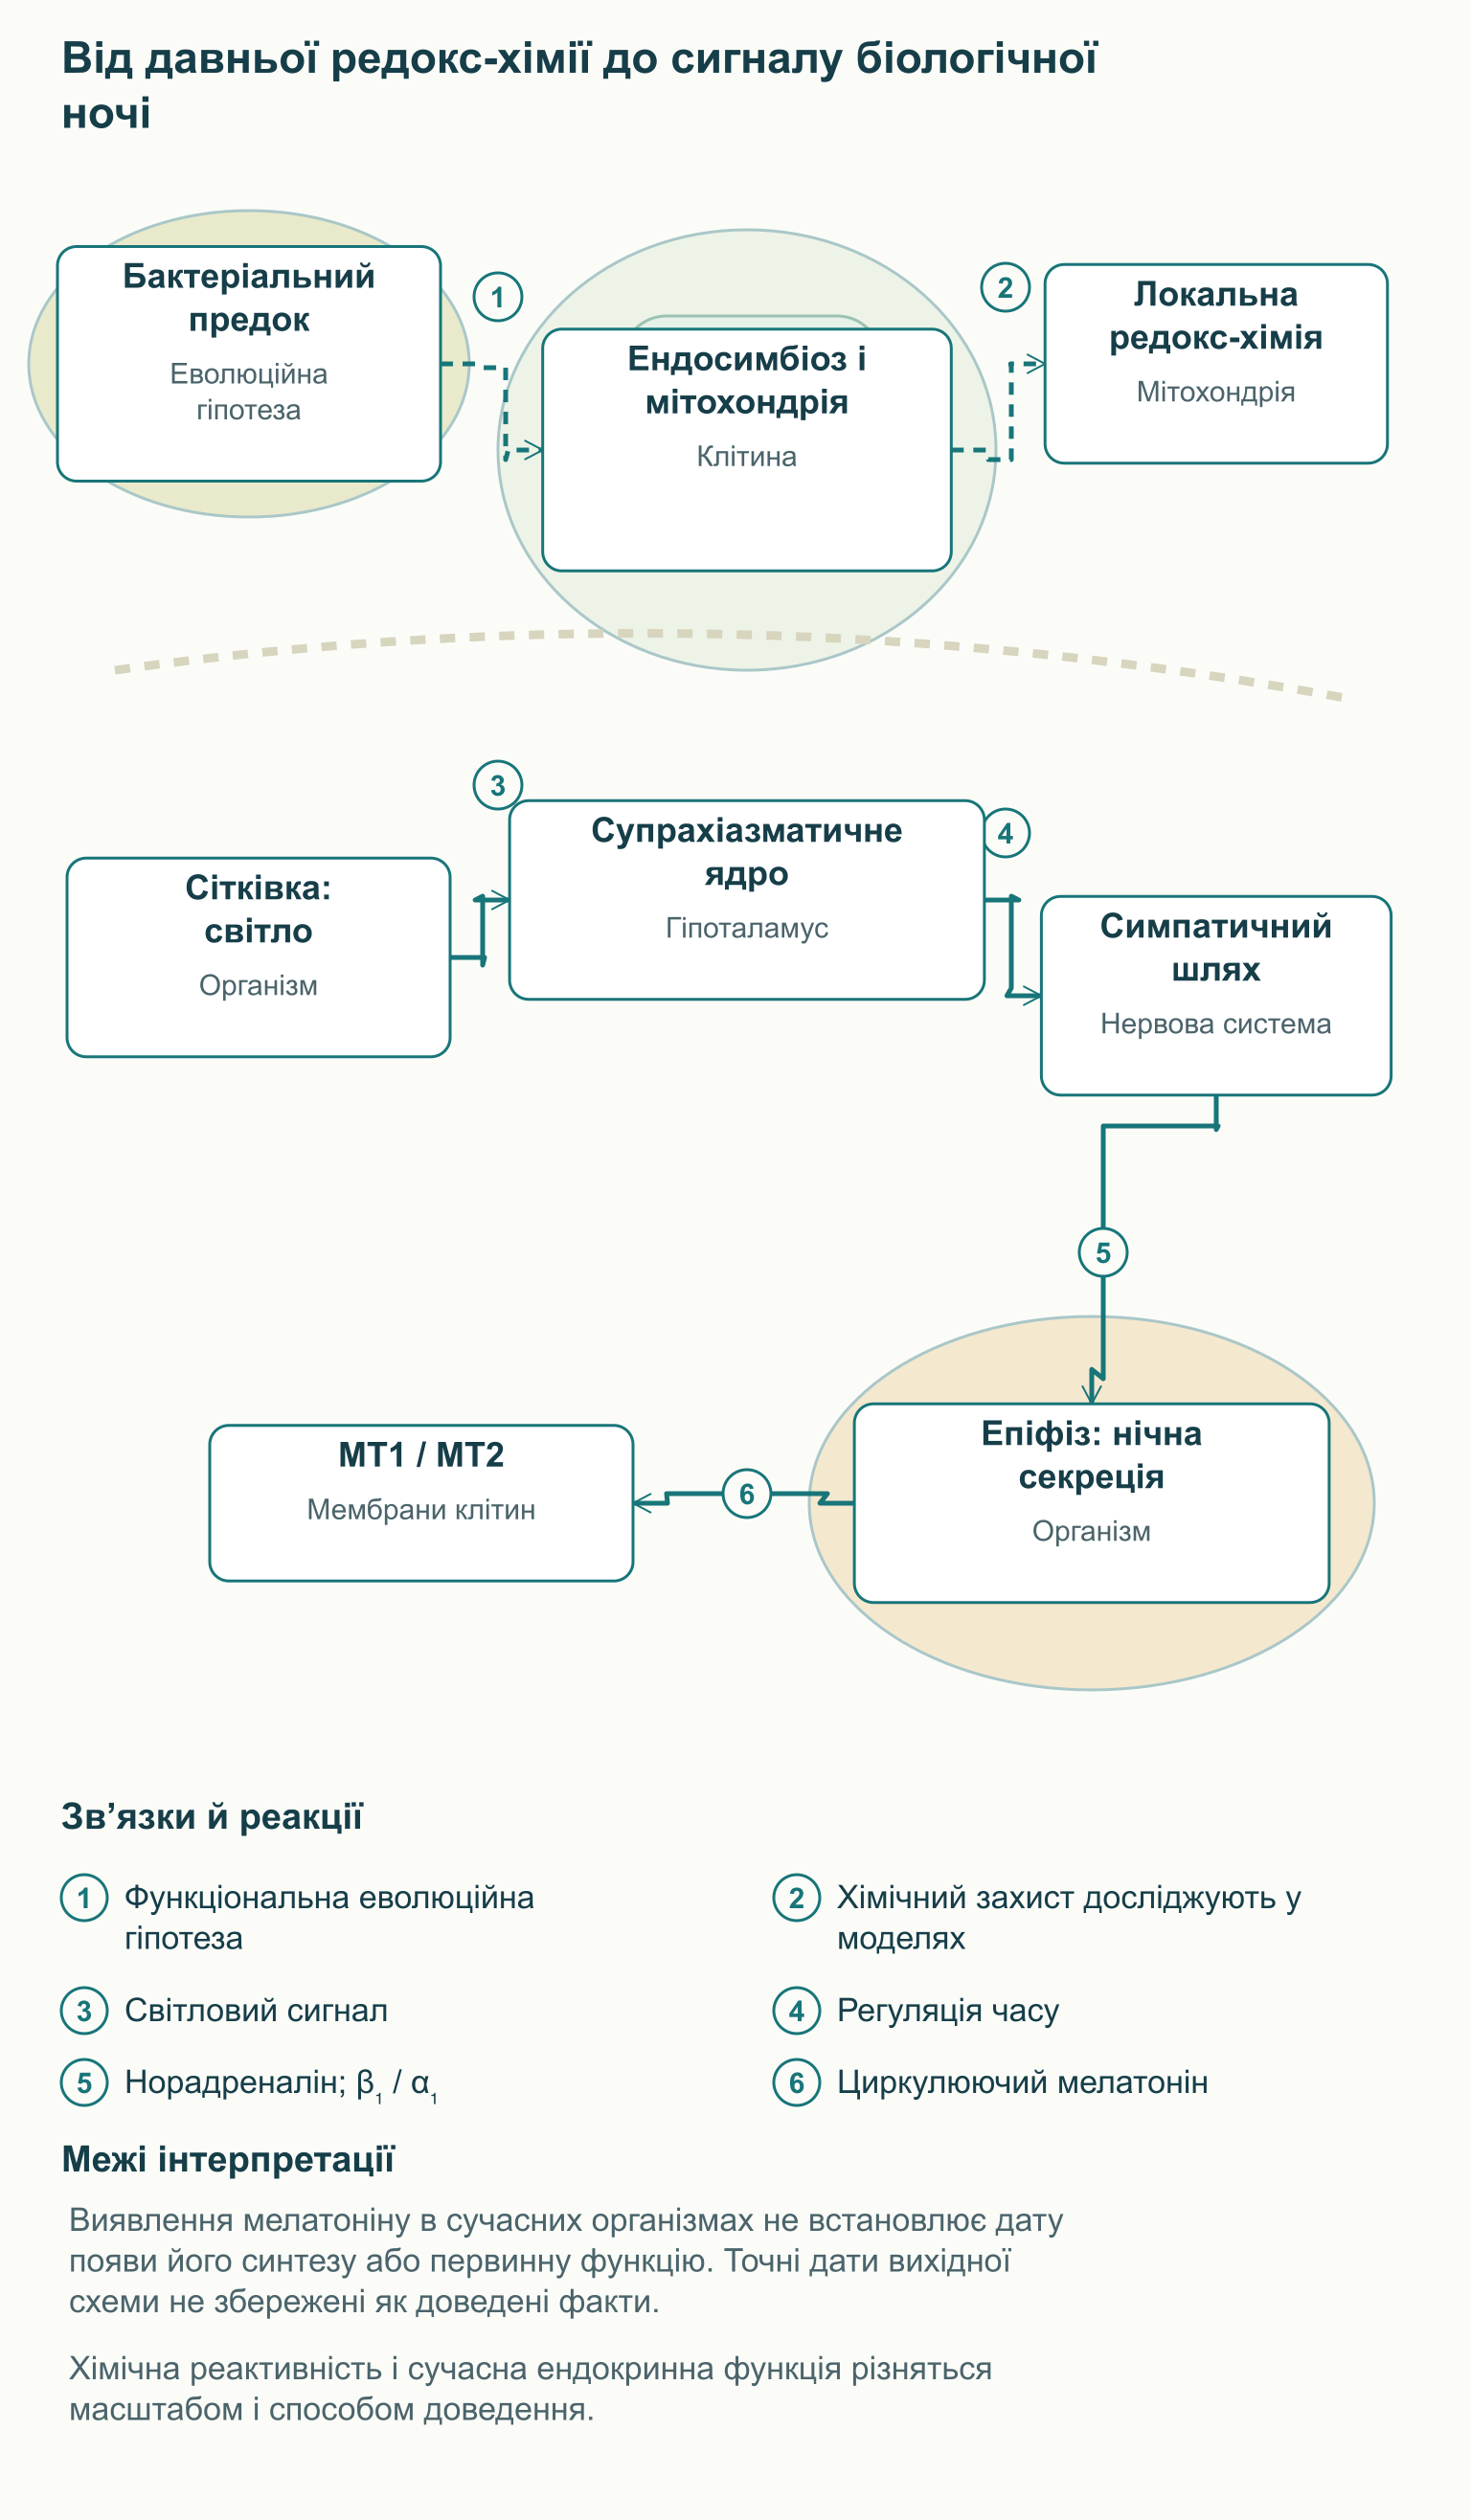
У людини епіфізарна секреція створює часовий сигнал, який допомагає організму розрізняти біологічний день і ніч. Відомості про освітлення надходять від сітківки до супрахіазматичного ядра гіпоталамуса, а далі через проміжні нервові ланки та симпатичний шлях досягають епіфіза. У цьому ланцюзі беруть участь паравентрикулярна ділянка, спінальні симпатичні нейрони та верхній шийний ганглій; норадреналін діє на β₁- і α₁-адренорецептори пінеалоцитів. Уночі цей механізм підтримує синтез мелатоніну, тоді як світло в біологічну ніч може пригнічувати секрецію та змінювати циркадну фазу.
Сон залежить також від накопиченого тиску сну, поведінки, захворювань і середовища, тому нічний гормональний сигнал не рівнозначний вимикачу свідомості. Людина може залишатися бадьорою за високого ендогенного мелатоніну або відчувати сонливість за низького його рівня. Саме тому збільшення кількості гормону не завжди усуває причину безсоння. Щоб зрозуміти скаргу, потрібно розрізняти недостатню можливість спати, труднощі сну за відповідного розкладу й невідповідність внутрішньої ночі соціально бажаному часу.
Циркулюючий мелатонін і локальні тканинні системи
Епіфіз — найважливіше джерело вираженого нічного ритму циркулюючого мелатоніну, але речовину й ферменти її утворення виявлено також поза цією залозою. До таких тканин належать шлунково-кишковий тракт і деякі клітинні системи мозку; конкретні результати залежать від виду, тканини й аналітичного методу. Робота з біопсією або гомогенатом відповідає на запитання про вміст речовини в зразку, але не обов’язково встановлює швидкість її синтезу. Для твердження про локальне утворення корисні вимірювання ферментної активності, метаболічного перетворення міченого субстрату й контроль чистоти виділеної органели.
У дослідженні людського гепатобіліарного та шлунково-кишкового тракту мелатонін вимірювали в біопсіях слизової, печінці, жовчі та зразках крові з різних судинних басейнів. Це підтверджує, що плазма — лише один із вимірюваних компартментів, однак радіоімунологічне визначення в тканині не є прямим вимірюванням мітохондріального синтезу. Вміст на масу тканини також не можна без додаткових припущень порівнювати з концентрацією на об’єм плазми. Різняться знаменник, зв’язування, розподіл і можливість потрапляння циркулюючої речовини в тканину.
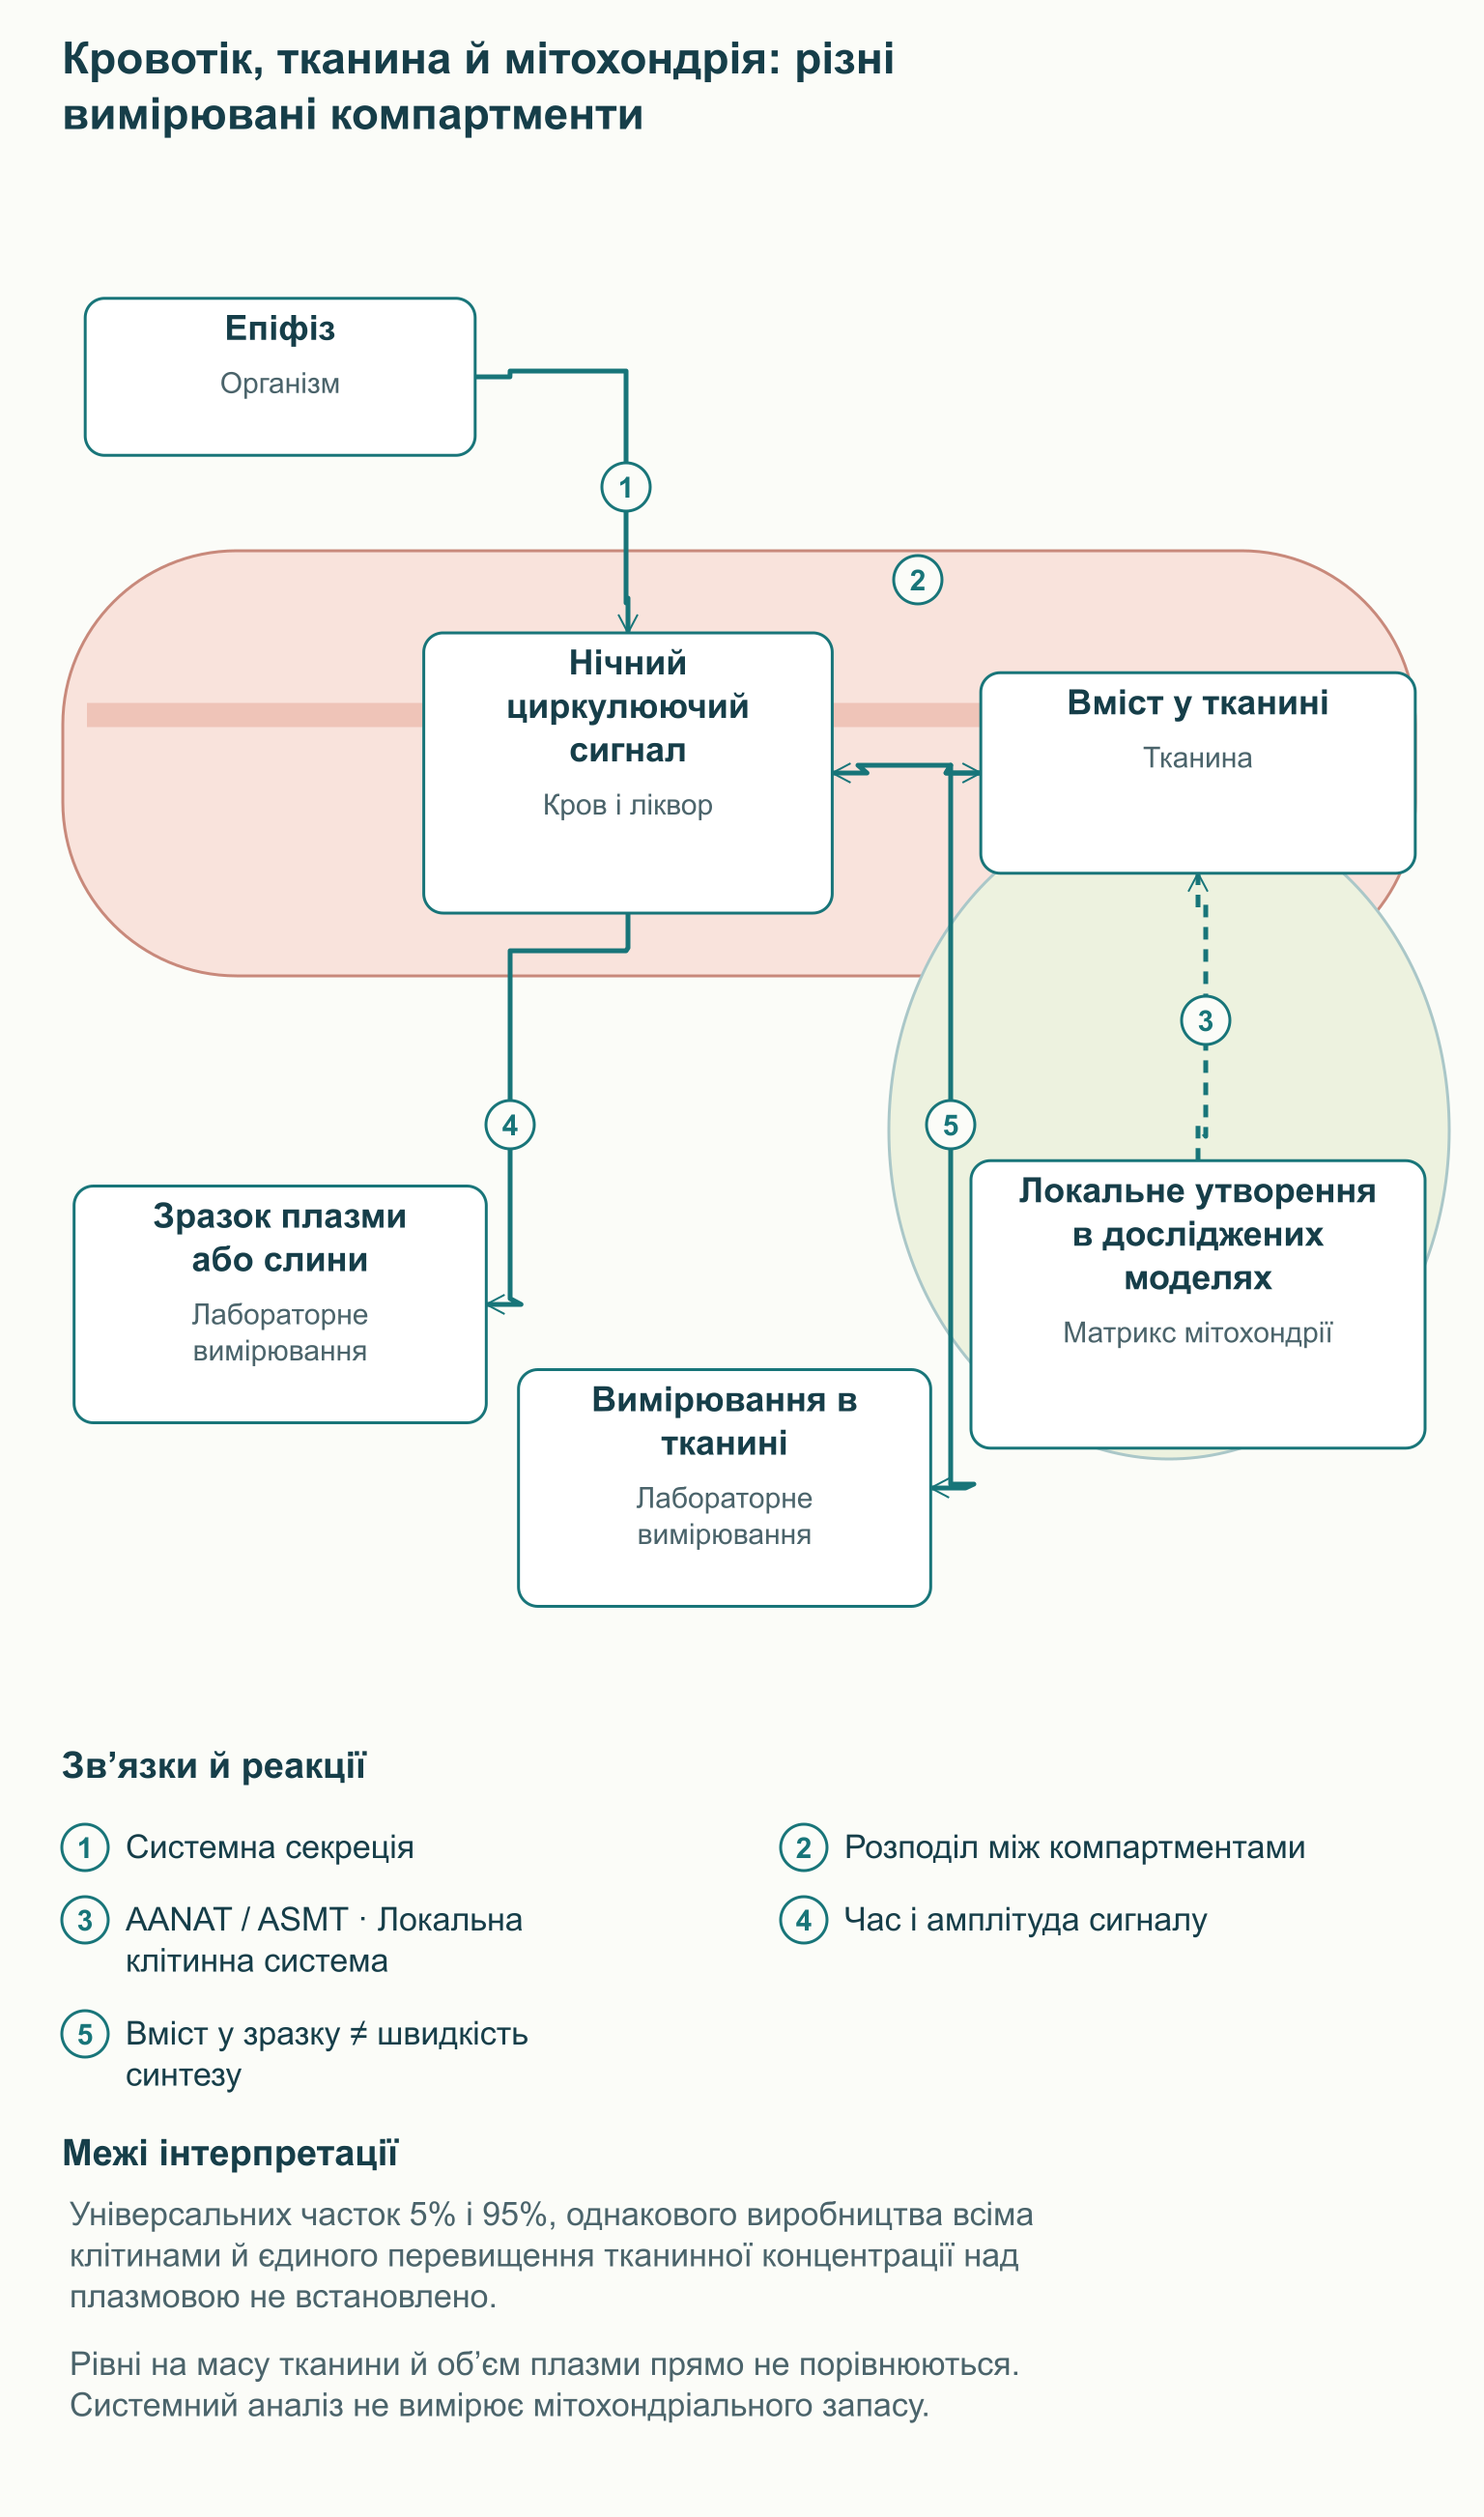
Уявлення про два цілком незалежні пули корисне як перше наближення, але надто жорстке для реальної фізіології. Циркулюючий мелатонін може проникати в тканини, а локальне утворення не обов’язково означає абсолютну ізоляцію від кровотоку. Не можна вважати встановленим, що всі ядровмісні клітини людини постійно синтезують однаково великий мітохондріальний пул. Тим більше наявні досліди не дозволяють приписати епіфізу менш як 5%, а мітохондріям понад 95% загального виробництва в людському організмі.
Рівень мелатоніну вночі залежить від віку, індивідуальної амплітуди ритму, освітлення, часу забору та методу аналізу. Навіть переконливо високий показник в окремому тканинному експерименті не встановлює універсального перевищення плазмового рівня в сто або тисячу разів. Після видалення епіфіза у тваринній моделі можна вивчати внесок залози в конкретний показник, але такий дослід не дає готової кількісної карти всієї людини. У клінічній практиці аналіз крові або слини використовують для оцінки часового сигналу, а не для підрахунку внутрішньоклітинного антиоксидантного запасу.
Синтез: від триптофану до ацетилювання й метилювання
Класичний шлях утворення мелатоніну починається з L-триптофану й включає чотири послідовні перетворення. Триптофангідроксилаза TPH утворює 5-гідрокситриптофан, або 5-HTP, за участю кисню й тетрагідробіоптерину BH₄; каталітична система залежить від заліза. Декарбоксилаза ароматичних L-амінокислот AADC далі видаляє карбоксильну групу з утворенням серотоніну й CO₂. Кофактором AADC є піридоксаль-5-фосфат, активна форма вітаміну B6: це декарбоксилювання, а не гідроліз.
Дві завершальні реакції використовують інших донорів хімічних груп. Арилалкіламін-N-ацетилтрансфераза AANAT переносить ацетильну групу з ацетил-КоА на серотонін, утворюючи N-ацетилсеротонін, або NAS, і вільний КоА. Ацетилсеротонін-O-метилтрансфераза ASMT, також відома як HIOMT, переносить метильну групу з S-аденозилметіоніну SAM на гідроксильну групу NAS. У результаті утворюються мелатонін і S-аденозилгомоцистеїн SAH, тому ацетилювання й метилювання потребують не лише ферментів, а й доступності відповідних субстратів.
Шлях можна прочитати без спеціального хімічного запису: L-триптофан —TPH→ 5-HTP —AADC→ серотонін —AANAT→ NAS —ASMT→ мелатонін. Стрілка тут позначає ферментну реакцію, а не переміщення молекули між клітинними відділами. В епіфізі AANAT є важливою регульованою ланкою нічної секреції, але назву «єдиний лімітуючий фермент» не варто автоматично переносити на будь-яку тканину й експериментальну ситуацію. Потік через увесь шлях залежить також від попередників, активності ASMT і видалення продуктів.
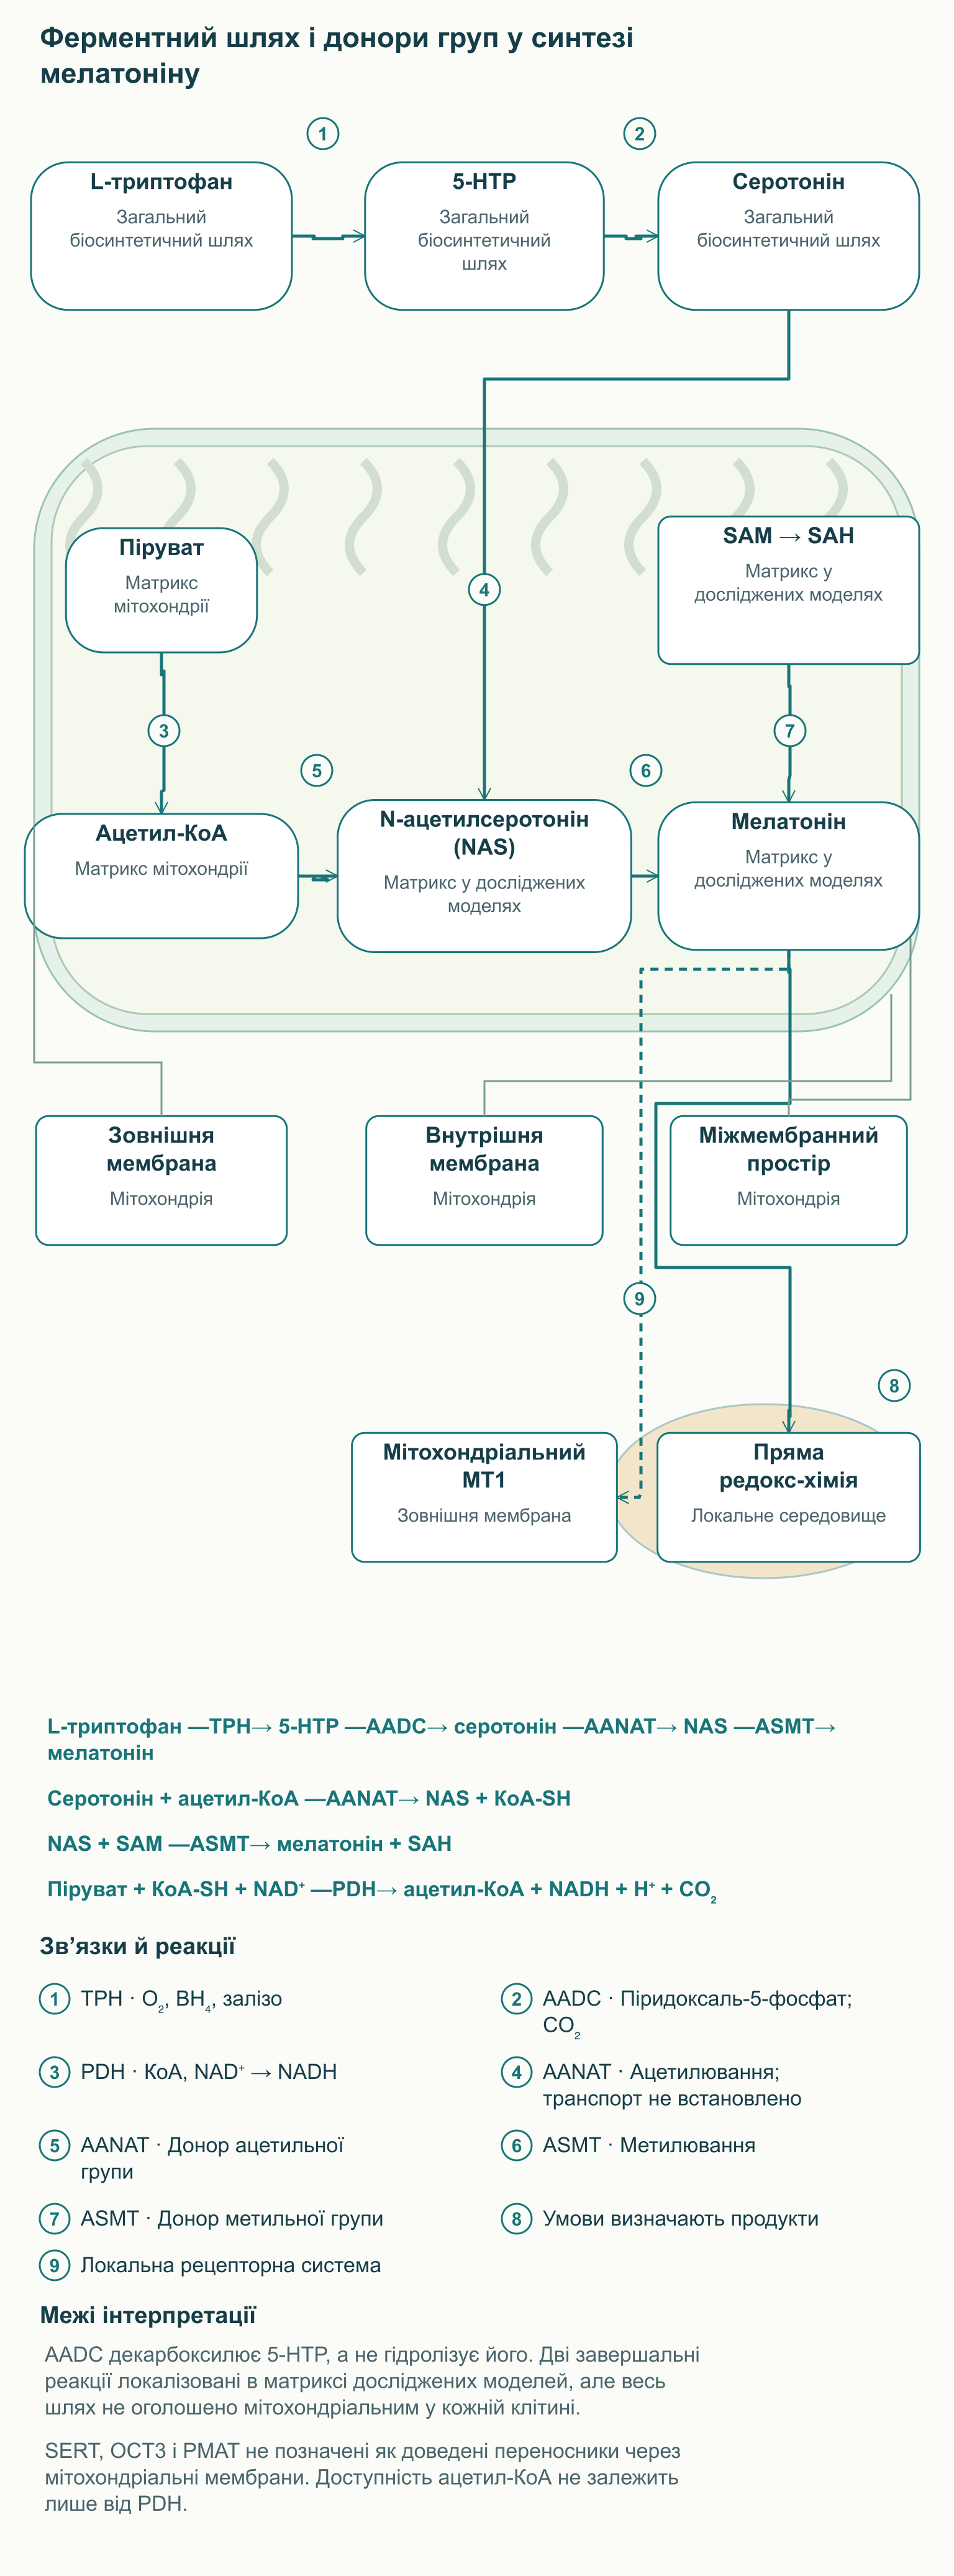
У роботі Suofu та колег ферменти AANAT і ASMT виявили в мітохондріальному матриксі в експериментальних системах, пов’язаних із мозком миші та нейрональними клітинами. Дослідження включало виділені мітохондрії й клітини N2a, тому воно суттєве для гіпотези локального синтезу, але не описує всі тканини людини. Наявність двох завершальних ферментів у матриксі не доводить, що всі чотири стадії завжди відбуваються там само. Попередники можуть надходити з інших відділів клітини, а шлях їхнього перенесення потребує окремого доказу.
Серотоніновий транспортер SERT, OCT3 і PMAT беруть участь у перенесенні моноамінів у певних клітинних системах, але це не робить їх установленими переносниками через обидві мітохондріальні мембрани. Тому схема не проводить через них підтверджену стрілку доставки серотоніну в матрикс. Відмінність між відомою реакцією та невстановленим транспортом особливо важлива для фахівця: інакше карта виглядає завершеною лише завдяки безпідставно доданій деталі. З тієї самої причини участь B6 або SAM у реакції не доводить користь їхнього додаткового приймання для сну в людини без відповідного дефіциту.
Ацетил-КоА, PDH та енергетичний обмін
Ацетил-КоА пов’язує утворення мелатоніну з ширшою мережею клітинного обміну. Піруватдегідрогеназний комплекс PDH каталізує окиснювальне декарбоксилювання пірувату, який надійшов у мітохондрію з гліколізу. Реакцію записують так: піруват + КоА-SH + NAD⁺ —PDH→ ацетил-КоА + NADH + H⁺ + CO₂. Ацетильна група далі може використовуватися в циклі трикарбонових кислот або інших реакціях, включно з ацетилюванням серотоніну там, де наявна відповідна ферментна система.
PDH — багатокомпонентний комплекс, а не простий канал, який відкривається за доброго сну. Його робота залежить від тіамінпірофосфату, ліпоамідної групи, FAD, КоА й NAD⁺, а також від енергетичного та редокс-стану матриксу. Кінази PDK фосфорилюють комплекс і знижують його активність, тоді як фосфатази PDP знімають це гальмування. Співвідношення NADH/NAD⁺ та ацетил-КоА/КоА відображають, наскільки клітина потребує подальшого окиснення пірувату.
Субстратний зв’язок PDH з AANAT не означає, що за гальмування PDH мітохондріальний мелатонін обов’язково зникає. Ацетил-КоА може утворюватися з жирних кислот та інших джерел, а його доступність визначається тканиною й метаболічним станом. Навіть зменшення конкретного потоку не дорівнює нульовому вмісту речовини в органелі. Для твердження про повну зупинку синтезу потрібно було б безпосередньо виміряти цей синтез за заданого втручання, а не вивести результат лише з красивого ланцюжка стрілок.
Практично цей зв’язок допомагає зрозуміти, чому дослідження мелатоніну перетинаються з біоенергетикою, але не обґрунтовує самостійного призначення «активаторів PDH». Він також не дозволяє діагностувати дефіцит мітохондріального мелатоніну за лактатом крові або втомою. Ці показники мають багато причин і не мають потрібної специфічності. Оцінюючи механізм, потрібно з’ясувати, чи вимірювали автори активність ферменту, метаболічний потік, концентрацію продукту або лише експресію відповідного гена.
MT1 і MT2: рецепторний сигнал у мембрані
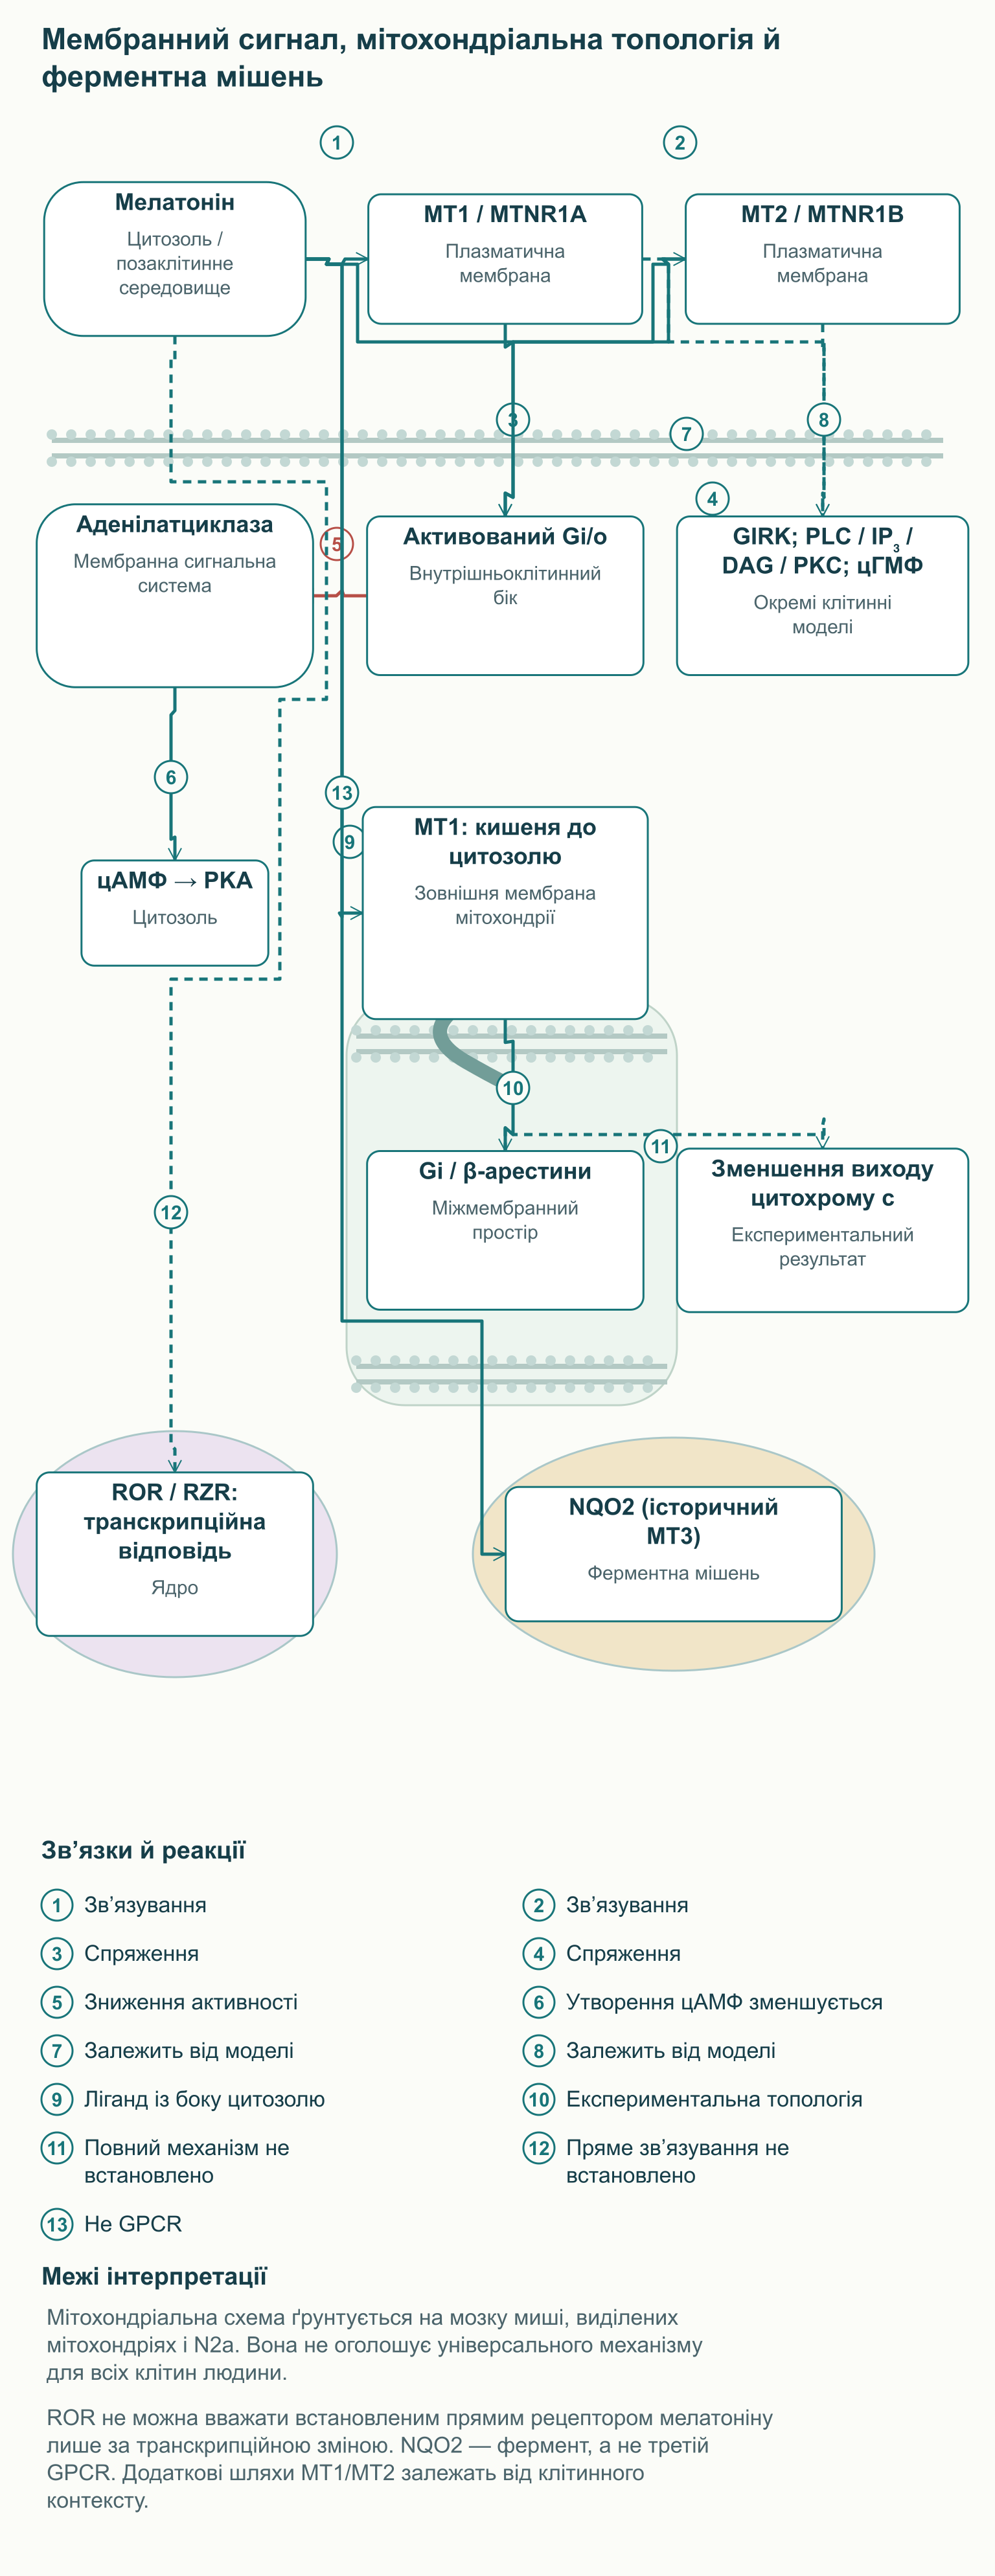
MT1 і MT2 — рецептори, спряжені з G-білками, які кодуються генами MTNR1A та MTNR1B. Їхня будова включає сім трансмембранних спіралей і ділянку зв’язування ліганду; структурні дослідження людських рецепторів показали деталі розпізнавання агоністів. Після активації рецептор змінює взаємодію з G-білком, а не просто утримує молекулу біля мембрани. Зв’язок із Gi/o дозволяє знижувати активність аденілатциклази й утворення циклічного AMP, або цАМФ, — одного з внутрішньоклітинних посередників.
Зниження цАМФ може зменшувати активацію протеїнкінази A, однак підсумкова відповідь визначається будовою конкретної клітини. G-білок складається з α- та βγ-компонентів; їхні сигнали можуть впливати на іонні канали й інші ферментні шляхи. У нейрональних системах досліджують калієві канали GIRK і зміни збудливості, а в окремих моделях — PLC, IP₃, DAG, PKC та цГМФ. Не можна складати всі ці спостереження в обов’язкову програму, яка однаково виконується кожним MT1 або MT2 у будь-якому органі.
| Характеристика | MT1 | MT2 |
|---|---|---|
| Ген і хромосомна ділянка | MTNR1A, 4q35.2 | MTNR1B, 11q14.3 |
| Клас мішені | Семитрансмембранний GPCR | Семитрансмембранний GPCR |
| Добре підтверджене спряження | Gi/o, зниження цАМФ у відповідних системах | Gi, зниження цАМФ у відповідних системах |
| Додаткові шляхи | Іонні канали й кінази; результат залежить від клітини | PLC/PKC та інші посередники в окремих моделях |
| Фізіологічний контекст | Нічний сигнал і нейрональна регуляція | Циркадна регуляція та метаболічні відповіді |
| Як розуміти афінність | Параметр конкретного ліганду й методу | Параметр конкретного ліганду й методу |
Константа дисоціації Kd описує зв’язування в певних експериментальних умовах, тому її не можна подавати як незмінне число для всіх тканин і препаратів. Структури з рамелтеоном або іншими агоністами не означають, що ці речовини мають повністю однакову фармакокінетику й клінічний ефект із мелатоніном. Аналогічно різниця між MT1 і MT2 не зводиться до формули «один присипляє, інший зсуває годинник». Циркадна система об’єднує різні клітини й сигнали, а підсумкова фазова відповідь залежить від часу впливу.
Судинні ефекти також не можна звести до універсального протиставлення звуження через MT1 і розширення через MT2. Відповідь залежить від судинного басейну, стану тканини, концентрації та інших регуляторних систем. Така спрощена схема особливо небезпечна, якщо з неї роблять висновок про передбачуване зниження тиску в конкретного пацієнта. У клініці тиск і самопочуття оцінюють безпосередньо, а механістичний опис використовують для постановки запитання, а не замість спостережуваного результату.
Мітохондріальний MT1: точна орієнтація й межі досліду
Дослідження Suofu запропонувало механізм локального мелатонінового сигналу, який автори назвали автомітокринним. У досліджених системах MT1 перебував на зовнішній мітохондріальній мембрані, причому лігандзв’язувальний бік був спрямований до цитозолю. Gi та β-арестини виявляли з боку міжмембранного простору. Це незвичайна топологія, і перестановка її боків змінює зміст усієї схеми: мелатонін не слід зображати таким, що зв’язується з кишенею, спрямованою всередину міжмембранного простору.
Локально утворений мелатонін може залишити матрикс і взаємодіяти з мішенню зовнішньої мембрани, але шлях його переміщення не можна вважати повністю описаним лише за положенням ферментів. У дослідах активація рецепторної системи супроводжувалася зниженням локального цАМФ і зменшенням виходу цитохрому c. При цьому Gi активується як гальмівний регулятор аденілатциклази: вислів «мелатонін пригнічує Gi» перевертає причинний зв’язок. Автори не встановили остаточно весь механізм обмеження виходу цитохрому c, тому стрілки до Bax, PKA та пори не слід видавати за завершену універсальну послідовність.
Для інтерпретації суттєві й технічні обмеження цієї роботи. Крім тканини мозку миші використовували клітини N2a з рекомбінантним MT1, а специфічність виявлення ендогенного рецептора становила методичну складність. Автори не показали безпосередньо, що саме мелатонін мітохондріального походження забезпечує таку саму нейропротекцію in vivo в людини. Отже, локальна рецепторна система — дослідницьке пояснення можливого клітинного ефекту, а не підстава підраховувати людську добову продукцію або обирати таблетовану дозу для захисту мозку.
ROR/RZR та NQO2: різні рівні взаємодії
Ядерні рецептори родини ROR регулюють транскрипцію, але пряме зв’язування мелатоніну з ними не слід вважати встановленим на підставі старої рецепторної схеми. У первинній роботі з овечою гіпофізарною тканиною досліджували наявність RORα та специфічного ядерного зв’язування міченого мелатоніну; наявність РНК рецептора не супроводжувалася виявленням відповідного ядерного зв’язування. У клітинах раку молочної залози описували зміну активності RORα під дією мелатоніну, однак транскрипційний ефект може бути непрямим. Різниця між зміною роботи фактора та фізичним зв’язуванням із ним принципова для вибору терміна «рецептор».
Тому регуляцію COX-2, iNOS, NF-κB або запальних генів не зображено як доведений універсальний ланцюжок «мелатонін — ROR — пригнічення запалення». Спостережувана зміна цих шляхів може залежати від клітинної моделі, часу й дози, а також від інших сигнальних мішеней. Вислів «ядерний ефект» описує місце кінцевої відповіді, але не обов’язково місце первинного зв’язування молекули. Це застереження зберігає зміст геномної регуляції, усуваючи неправильно призначеного прямого посередника.
Історичний сайт MT3 пов’язаний з іншою молекулярною мішенню — ферментом хінонредуктазою-2 NQO2. Його ідентифікували за допомогою виділення білка, молекулярних методів та експресії людського ферменту в клітинах; пізніше взаємодію вивчали кінетичними й структурними методами. NQO2 не є третім семитрансмембранним мелатоніновим рецептором і не має стояти поруч із MT1 та MT2 як ще один GPCR. Зв’язування або інгібування ферменту також не гарантує загального «знешкодження всіх хінонів»: результат залежить від субстрату й умов редокс-реакції.
Пряма редокс-хімія: швидкість реакції та конкуренція в клітині
Мелатонін може вступати в реакції з окремими активними формами кисню й азоту без участі мембранного рецептора. В одному з досліджень імпульсного радіолізу швидкість реакції з гідроксильним радикалом характеризувалася константою близько 1,3 × 10¹⁰ М⁻¹·с⁻¹, близькою до дифузійної межі. Така величина показує високу хімічну реактивність за заданих умов досліду. Вона не означає, що невелика пероральна доза встигає нейтралізувати кожен гідроксильний радикал у всіх тканинах організму.
Швидкість реакції другого порядку залежить не лише від константи k, а й від концентрацій обох учасників: v = k × [мелатонін] × [радикал]. У клітині радикал одночасно зустрічає білки, ліпіди, нуклеїнові кислоти та інші низькомолекулярні сполуки. Тому ймовірність реакції визначається конкуренцією, відстанню до місця утворення та доступністю речовини у відповідному компартменті. Гідроксильний радикал надзвичайно короткоживучий, і для нього запобігання утворенню часто важливіше за доставку «пастки» з кровотоку після початку пошкодження.
Інші активні форми не можна автоматично прирівнювати до гідроксильного радикала. У дослідах із різними способами генерації й реєстрації реактивних сполук отримували різні оцінки активності мелатоніну, зокрема значно слабшу реакцію із супероксидом. Пероксинітрит ONOO⁻ при цьому не є вільним радикалом, хоча бере участь у нітрозативному пошкодженні та утворенні вторинних реактивних продуктів. Наукова схема має розрізняти хімічні види, а не об’єднувати їх словом «радикали» з однаковою швидкістю видалення.
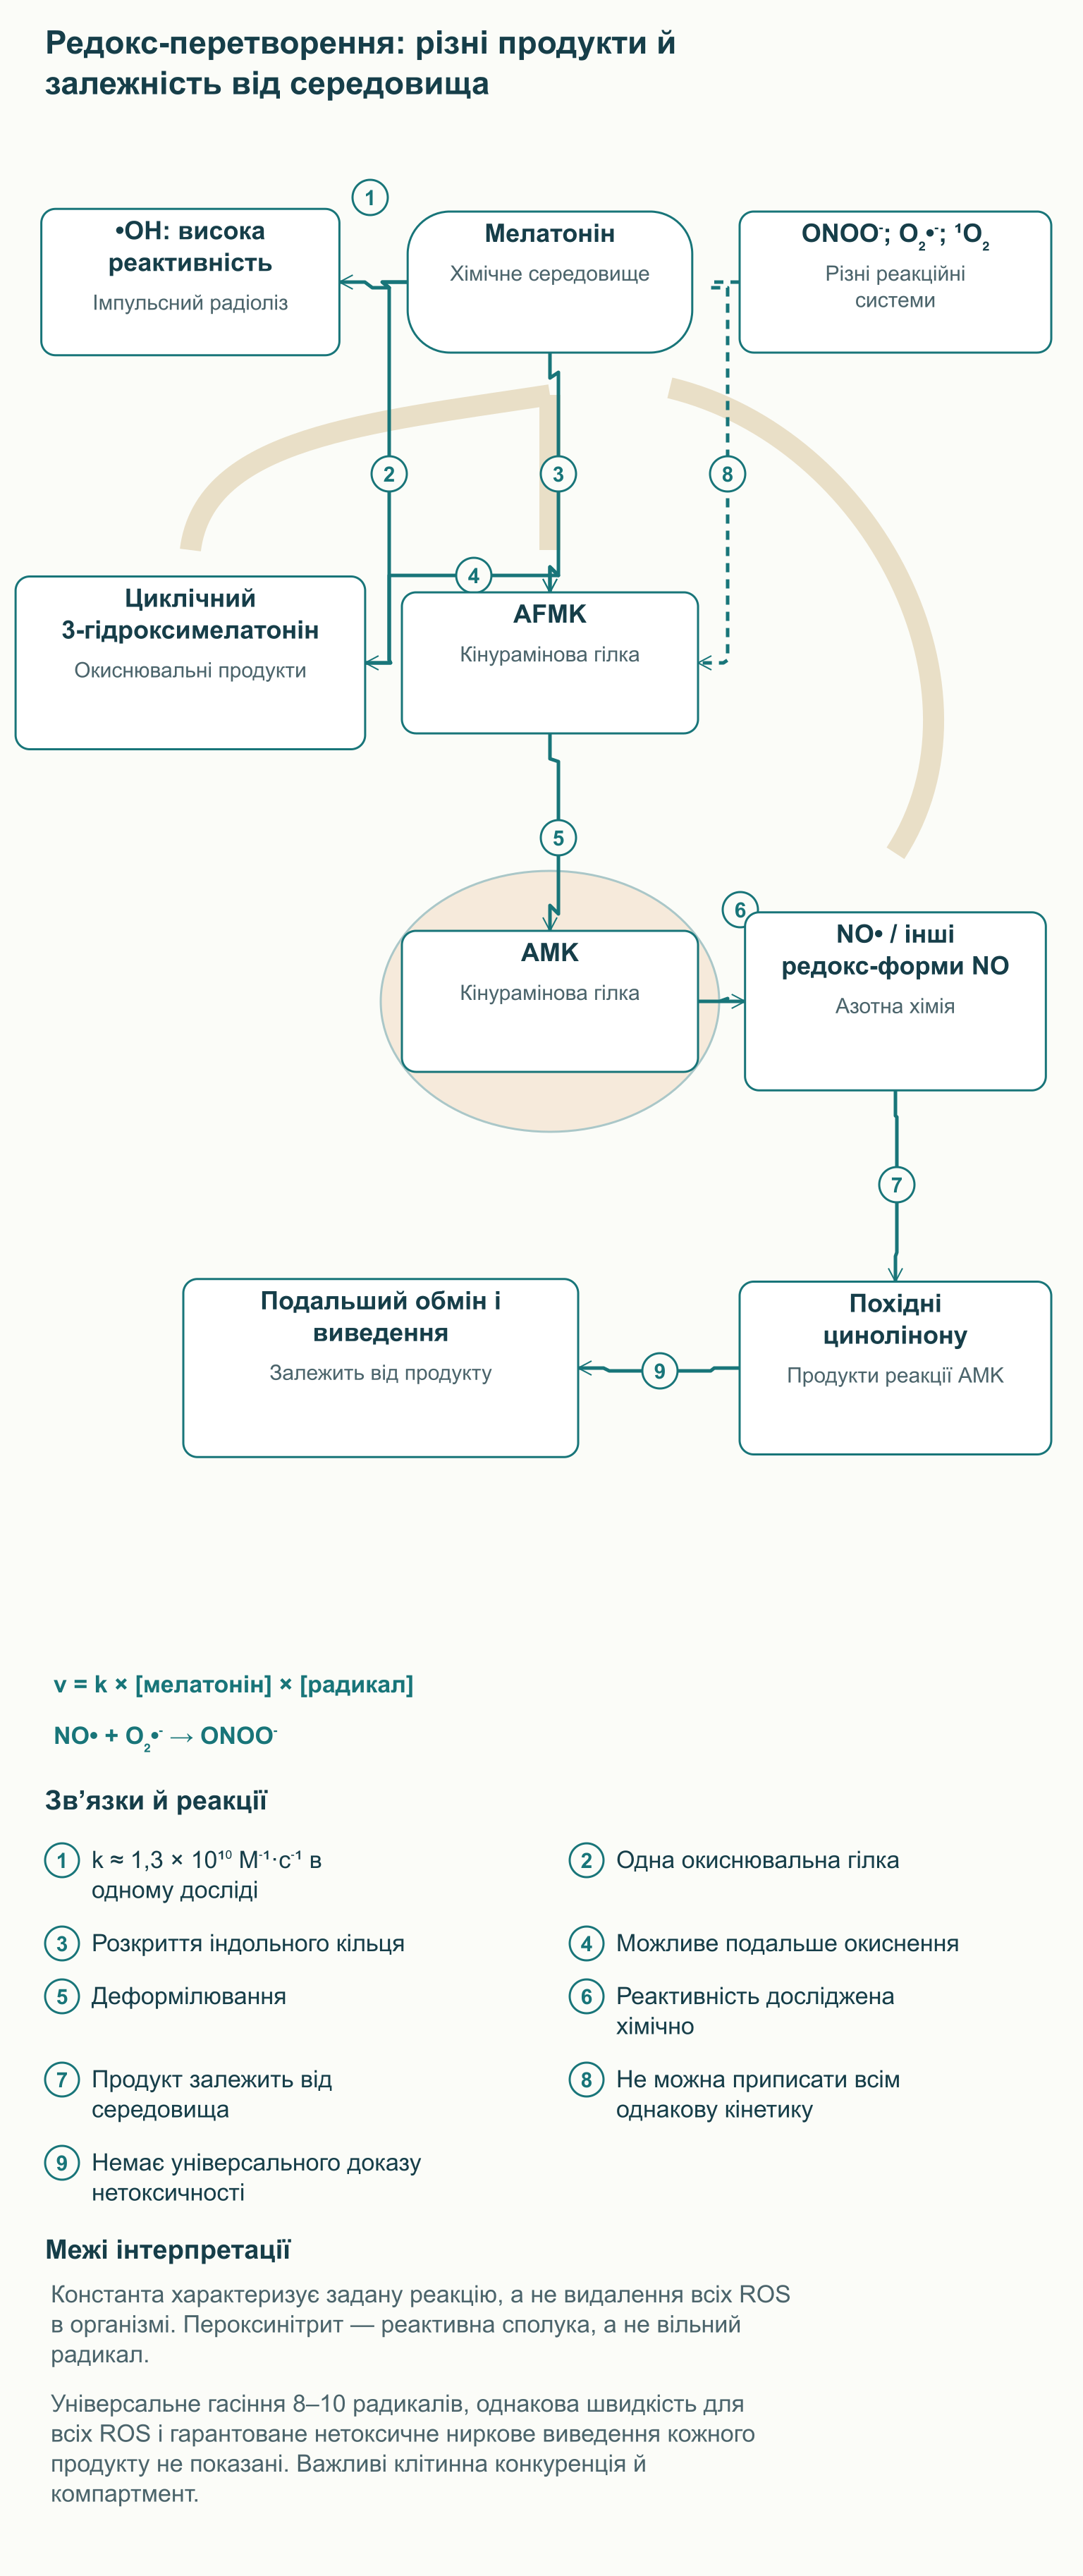
Частина окиснювальних перетворень розкриває індольне кільце мелатоніну з утворенням AFMK — N¹-ацетил-N²-форміл-5-метоксикінураміну. Деформілювання AFMK може приводити до AMK, N¹-ацетил-5-метоксикінураміну, який також бере участь у реакціях з азотовмісними сполуками. У первинних хімічних дослідах AMK реагував із різними редокс-формами NO, утворюючи, серед іншого, похідну цинолінону. Це точніший опис, ніж єдина стрілка до «нетоксичного циноліну», який нібито завершує будь-яку реакцію мелатоніну.
Ідея антиоксидантного каскаду означає, що активність може зберігатися в деяких продуктів перетворення. Але фраза «одна молекула гарантовано гасить вісім–десять радикалів» не є універсальною клітинною або клінічною стехіометрією. Шлях залежить від середовища, окисника, ферментної участі та подальшої долі продуктів, а відсутність токсичності потрібно встановлювати окремо. Також неправильно протиставляти мелатонін вітамінам C та E як абсолютно безпечну молекулу проти неминуче прооксидантних антиоксидантів: біологічний ефект усіх цих речовин залежить від умов.
Nrf2, антиоксидантні ферменти й глутатіоновий цикл
Рецепторна передача сигналу й пряме зв’язування реактивних сполук не вичерпують можливих ефектів мелатоніну. В експериментальних моделях досліджують також зміни експресії та активності захисних ферментів, зокрема через фактор Nrf2. У базовому стані система Keap1 допомагає спрямовувати Nrf2 на деградацію; за зміни редокс-сигналів стабільність фактора підвищується, і він може накопичуватися в ядрі. Там Nrf2 разом з іншими білками регулює гени, які містять відповідні елементи відповіді ARE.
У дослідах Ding і колег із травматичним пошкодженням мозку мишей вивчали Nrf2-ARE як можливого посередника дії мелатоніну. Спостерігали зміни ядерного Nrf2, захисних показників і ферментних відповідей; використання тварин із порушеним Nrf2 допомагало з’ясувати участь цього шляху. Це експериментальна травма та експериментальне введення, а не клінічне випробування звичайної таблетки для запобігання пошкодженню мозку. Зміна Nrf2 також не доводить, що мелатонін завжди прямо активує ERK, відокремлює Keap1 та однаково підвищує кожен антиоксидантний фермент.
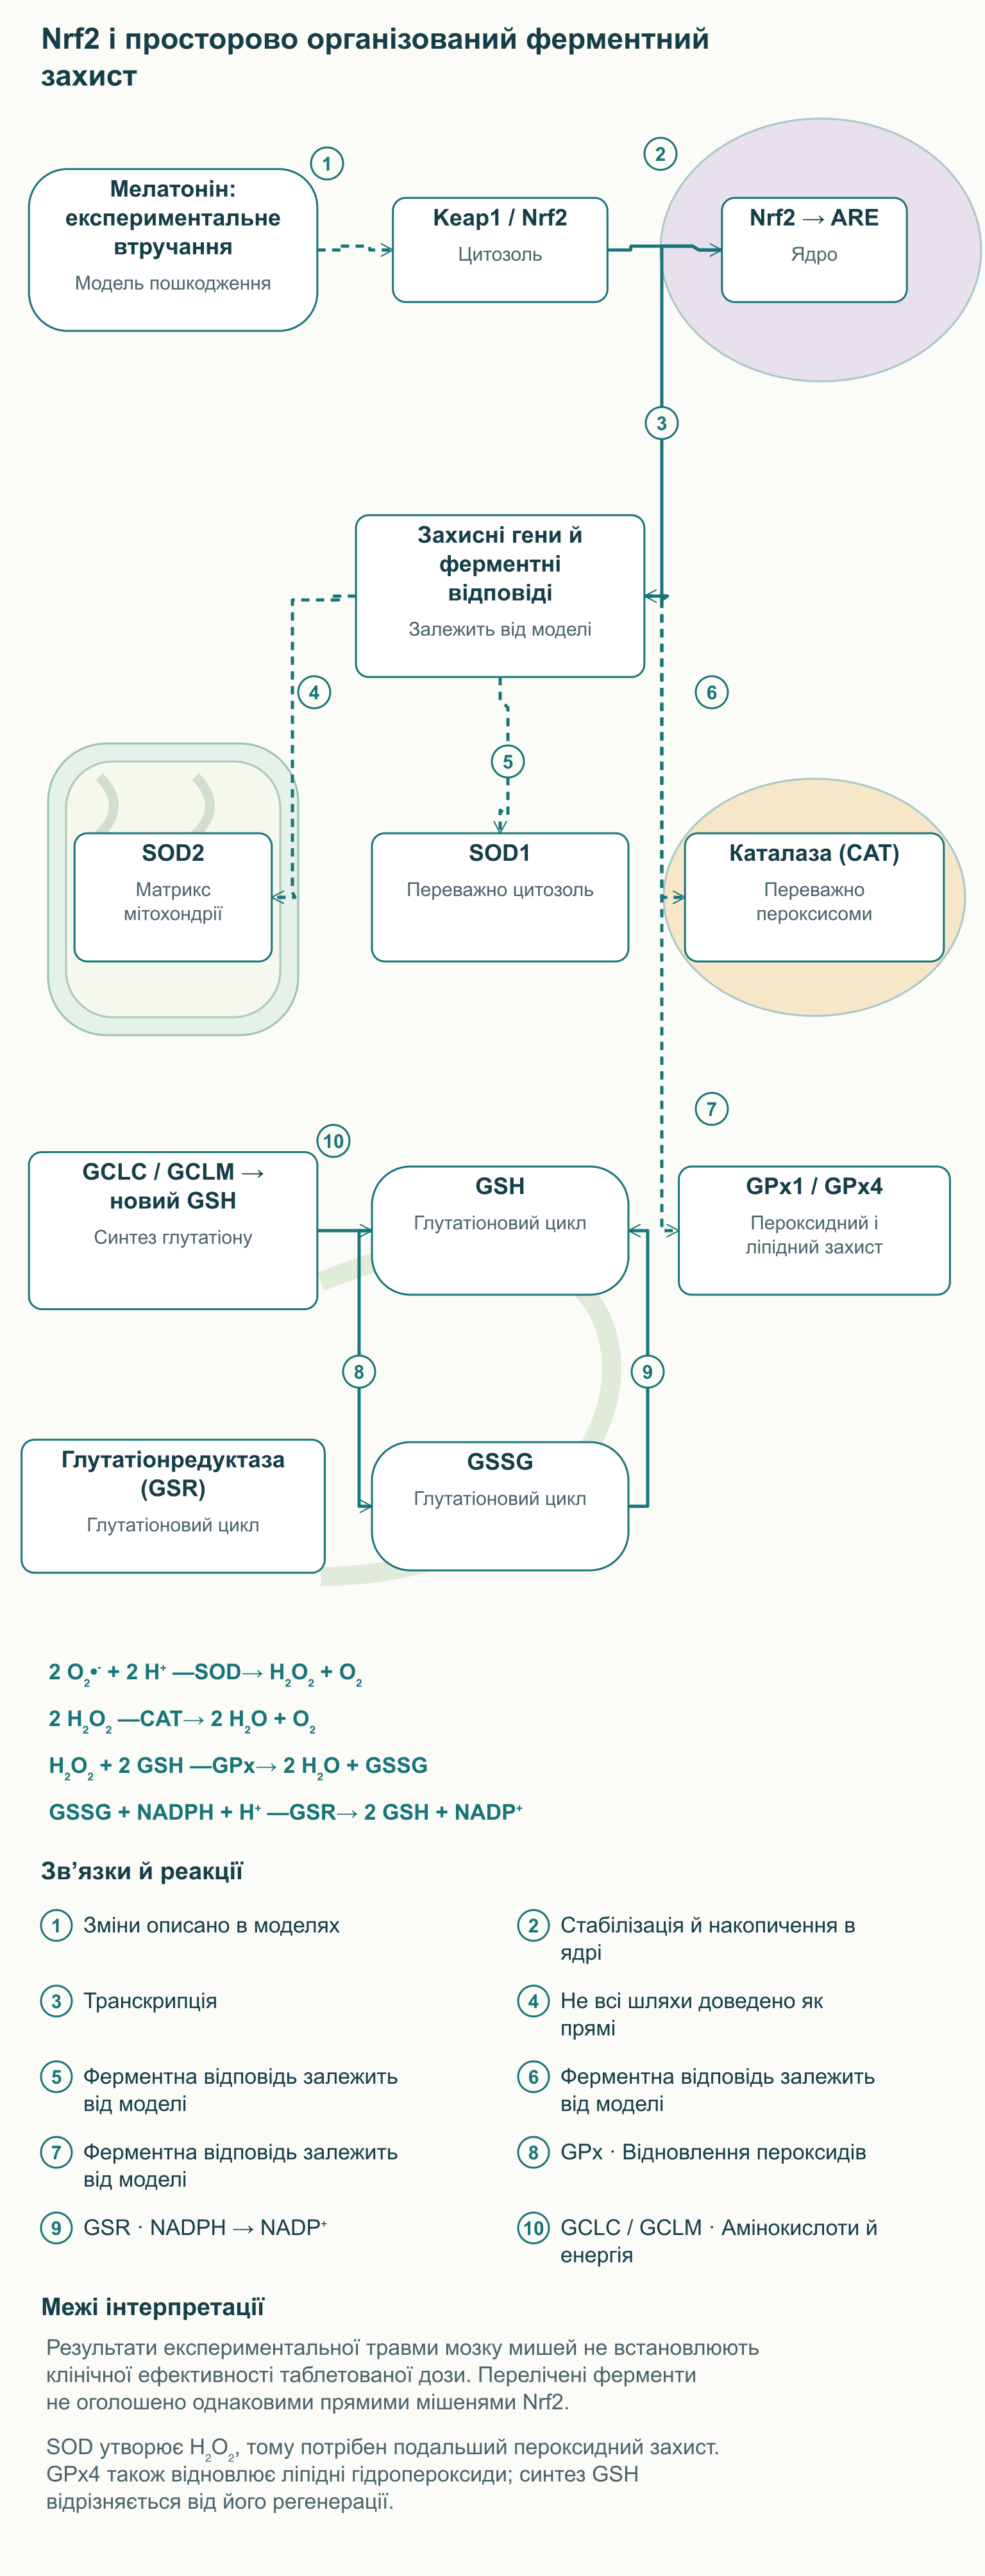
Ферментний захист має просторову організацію. SOD2 переважно працює в мітохондріальному матриксі, тоді як SOD1 перебуває головним чином у цитозолі й також в окремих інших компартментах; каталаза переважно пов’язана з пероксисомами. Супероксиддисмутаза перетворює супероксид на H₂O₂: 2 O₂•⁻ + 2 H⁺ → H₂O₂ + O₂. Це усунення однієї реактивної сполуки з утворенням іншої, тому системі потрібен подальший контроль пероксиду водню.
Каталаза здійснює реакцію 2 H₂O₂ → 2 H₂O + O₂, а глутатіонпероксидази використовують відновлений глутатіон GSH. Для пероксиду водню реакцію можна записати як H₂O₂ + 2 GSH → 2 H₂O + GSSG, де GSSG — окиснений дисульфід глутатіону. Глутатіонредуктаза відновлює його за участю NADPH: GSSG + NADPH + H⁺ → 2 GSH + NADP⁺. GPx4 особливо важлива для відновлення ліпідних гідропероксидів, тому її функцію не можна обмежувати тією самою картинкою вільного H₂O₂.
Новий GSH утворюється у дві ферментні стадії, перша з яких включає глутамат-цистеїнлігазу з каталітичною GCLC та регуляторною GCLM. Доступність амінокислот, енергія й відновний потенціал визначають роботу циклу разом з експресією білків. На схемі підтверджена архітектура захисної системи відокремлена від експериментальних змін під дією мелатоніну. Це дозволяє зрозуміти можливе посилення захисту, не видаючи всі перелічені гени за однаково доведені прямі мішені Nrf2 у всіх тканинах.
mPTP, зовнішня мембрана й два різні шляхи загибелі клітини
Мітохондріальний перехід проникності пов’язаний зі збільшенням проникності внутрішньої мембрани для невеликих розчинених речовин. За тривалого відкриття mPTP слабшає мембранний потенціал ΔΨm, порушується спряження дихання із синтезом ATP, а вода може спричиняти набухання матриксу. Перехід полегшується перевантаженням кальцієм та окиснювальним стресом, але не є єдиною лінійною реакцією за будь-якого пошкодження. Наслідки залежать від тривалості, енергетичного стану клітини й здатності відновити мембранний градієнт. За втрати градієнта ATP-синтаза за певних умов здатна працювати у зворотному напрямку, витрачаючи ATP для перенесення протонів замість його утворення.
Циклофілін D, або CypD, — матриксний регулятор чутливості до переходу проникності. Експерименти з мишами, позбавленими гена Ppif, показали стійкість мітохондрій до певних кальцієвих та окиснювальних впливів і захист в окремих моделях ішемії-реперфузії. Однак такі зміни не запобігали всім варіантам апоптотичної загибелі. Зокрема, результати підкреслювали відмінність CypD-залежного переходу від деяких шляхів, регульованих білками родини Bcl-2.
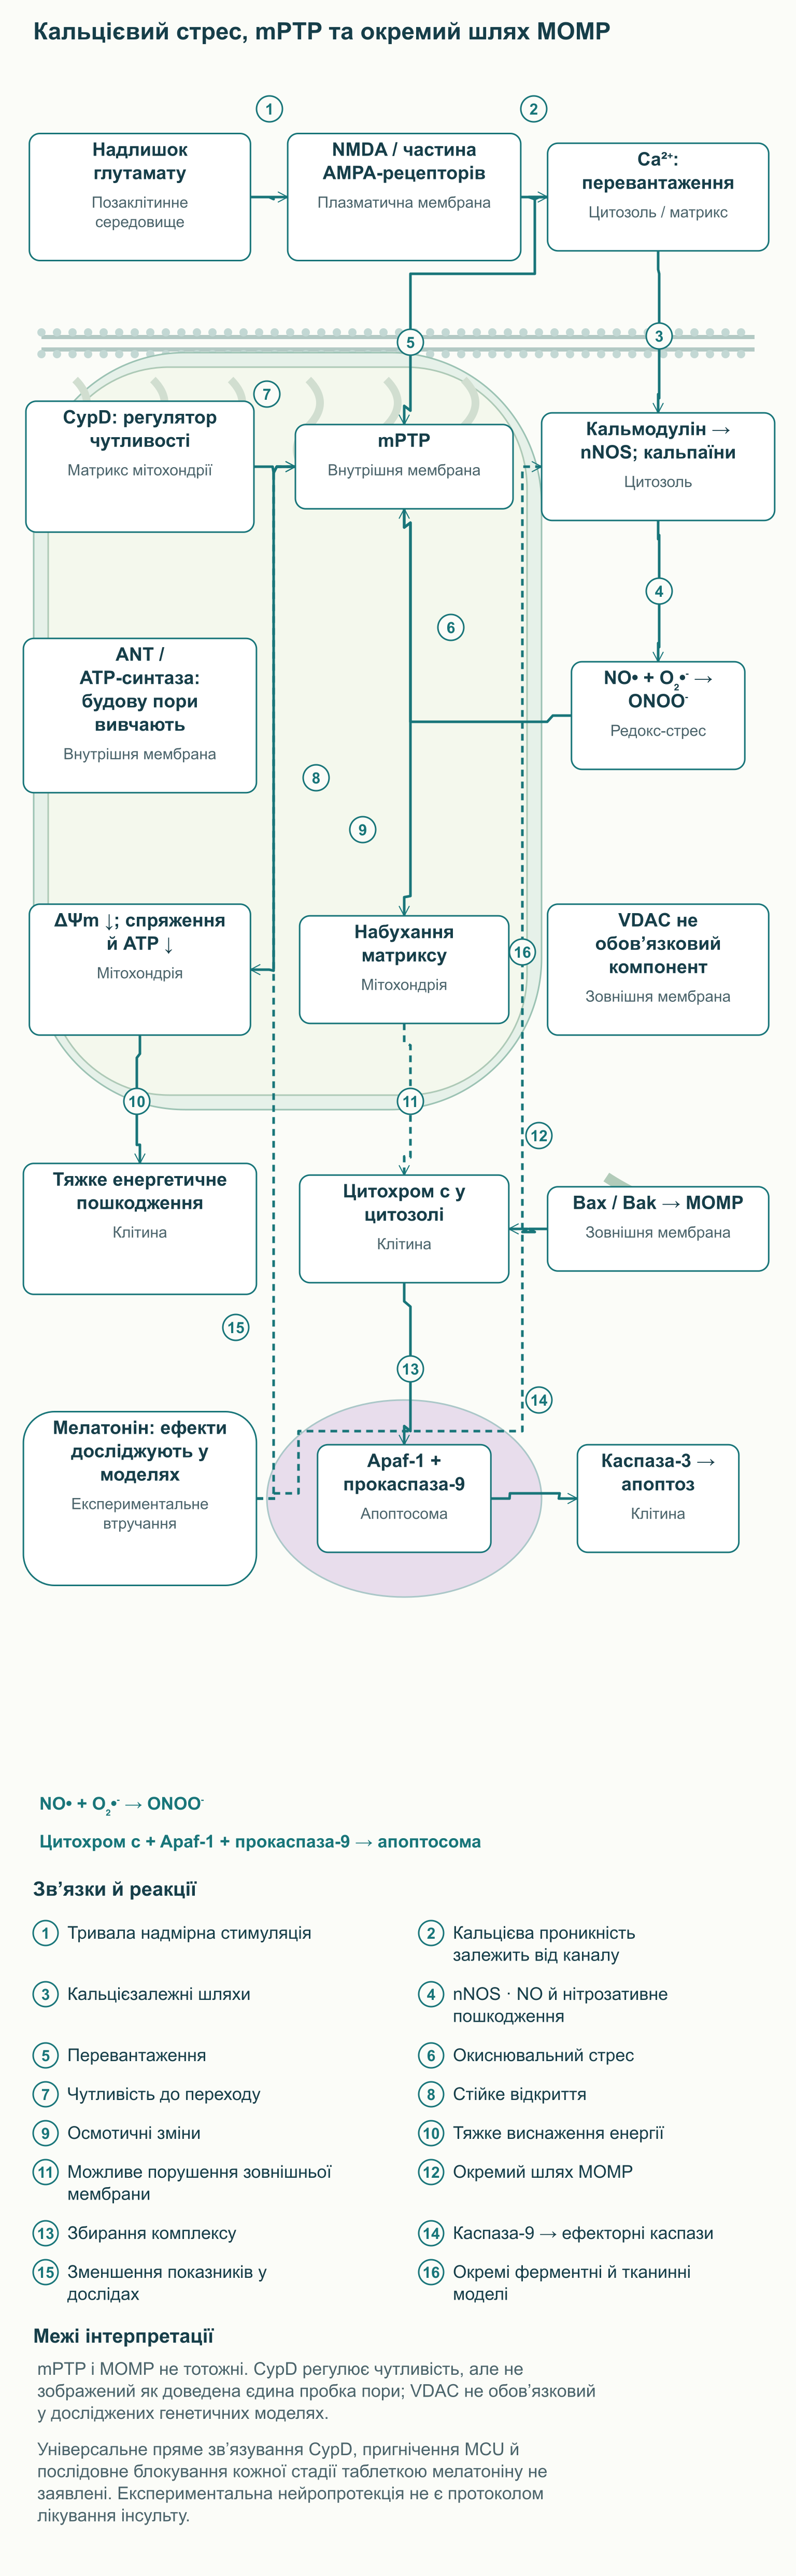
Склад mPTP не можна подавати як остаточно встановлений комплекс з ANT, VDAC, CypD та ATP-синтази. Роль ANT і ATP-синтази вивчається в різних моделях, а VDAC розташований у зовнішній мембрані; первинні генетичні досліди показали, що VDAC не обов’язковий для досліджених варіантів переходу проникності й загибелі клітини. CypD важливий для регуляції, але це не рівнозначно визнанню його єдиною структурною пробкою пори. Сучасна схема показує досліджувані компоненти й місця їхнього розташування, зберігаючи невизначеність молекулярної будови.
Окремий процес — MOMP, підвищення проникності зовнішньої мітохондріальної мембрани, яке можуть запускати Bax і Bak. Вихід цитохрому c у цитозоль сприяє збиранню апоптосоми з Apaf-1 і прокаспазою-9, після чого активуються ефекторні каспази, включно з каспазою-3. Набухання після стійкого mPTP теж може порушувати зовнішню мембрану, однак ці шляхи не можна вважати тотожними. За тяжкого дефіциту ATP загибель клітини може розвиватися з переважанням некротичного пошкодження, а не обов’язково через завершений каспазний каскад.
У дослідах Andrabi та колег мелатонін зменшував показники переходу проникності, що підтримало гіпотезу його участі в мітохондріальному захисті. Але цей результат не доводить прямого фізичного блокування CypD або універсального пригнічення кальцієвого уніпортера MCU. Спостереження зменшеного виходу цитохрому c в іншій системі також не розкриває автоматично всі проміжні білкові взаємодії. Для клінічного перенесення потрібні дослідження, що пов’язують певну експозицію зі збереженням функції органа, а не лише з окремим маркером пошкодження.
Ексайтотоксичність: від синапсу до мітохондрії
Глутамат потрібний для нормальної передачі сигналу, навчання й пластичності, але надмірна тривала активація його рецепторів може пошкоджувати нейрон. За енергетичного порушення погіршується зворотне захоплення медіатора, і позаклітинний глутамат накопичується. NMDA-рецептори здатні пропускати Ca²⁺, а участь AMPA-рецепторів залежить, зокрема, від їхнього субодиничного складу: не кожен AMPA-канал однаково проникний для кальцію. Тому схема не малює всі глутаматні рецептори як однакові отвори для необмеженого кальцієвого потоку.
Зростання цитозольного Ca²⁺ змінює роботу кальмодуліну, протеаз кальпаїнів і нейрональної NO-синтази nNOS. Утворений NO може реагувати із супероксидом: NO• + O₂•⁻ → ONOO⁻. Мітохондріальне перевантаження кальцієм і редокс-пошкодження мембран потім посилюють енергетичний збій, створюючи позитивний зворотний зв’язок. Пошкодження білків і ліпідів у цій ситуації поєднується з порушенням іонних градієнтів і передачею сигналів загибелі клітини.
Мелатонін і деякі його метаболіти досліджували як модифікатори окремих ланок цього процесу. Наприклад, у ферментних дослідах і в моделі з тканинами мозку вивчали вплив AMK і мелатоніну на активність nNOS, тоді як AFMK не показував того самого ефекту в цій системі. В інших моделях оцінювали кальцієвий обмін, окиснювальне пошкодження, Bax/Bcl-2 і каспази. Сукупність таких робіт пояснює інтерес до нейропротекції, але не підтверджує обов’язкового послідовного блокування NMDA, кальмодуліну, nNOS, апоптосоми й каспази-3 будь-якою пероральною дозою.
Професійна інтерпретація має враховувати час втручання й доступність речовини в тканині. За ішемії деякі процеси розвиваються швидко, а висока концентрація, внесена безпосередньо в клітинне середовище, не рівнозначна експозиції після таблетки. Крім того, зменшення лабораторного маркера не обов’язково означає зменшення інвалідизації або покращення виживаності. Тому мелатонін тут не подано як спосіб екстреного лікування інсульту, а за ознак інсульту потрібна негайна стандартна медична допомога.
Ефект Варбурга й контекст метаболічної відповіді
Ефект Варбурга означає підвищене утворення лактату з глюкози за доступного кисню, а не повну відсутність мітохондріального дихання. Пухлинна клітина може одночасно використовувати гліколіз, цикл трикарбонових кислот та окиснювальне фосфорилювання, спрямовуючи вуглець також на синтез клітинних компонентів. Піруват перебуває в точці розгалуження: лактатдегідрогеназа переводить його в лактат, а PDH забезпечує надходження ацетильної групи в мітохондріальний обмін. Зміна PDK здатна впливати на цей розподіл, але не пояснює одноосібно всю пухлинну біоенергетику.
У первинних дослідженнях пухлинних моделей зв’язок PDK з гіпоксичною відповіддю й продукцією лактату вивчали незалежно від мелатоніну. Роботи з мелатоніном у клітинних лініях також показують, що його ефект може бути неоднаковим у здоровій і пухлинній системі. У клітинах плоскоклітинного раку голови та шиї досліджували посилення дії цисплатину й опромінення, яке супроводжувалося підвищенням мітохондріальних ROS, апоптозом та аутофагією. Такий результат особливо наочно показує, чому не можна приписувати мелатоніну абсолютну відсутність прооксидантної дії.
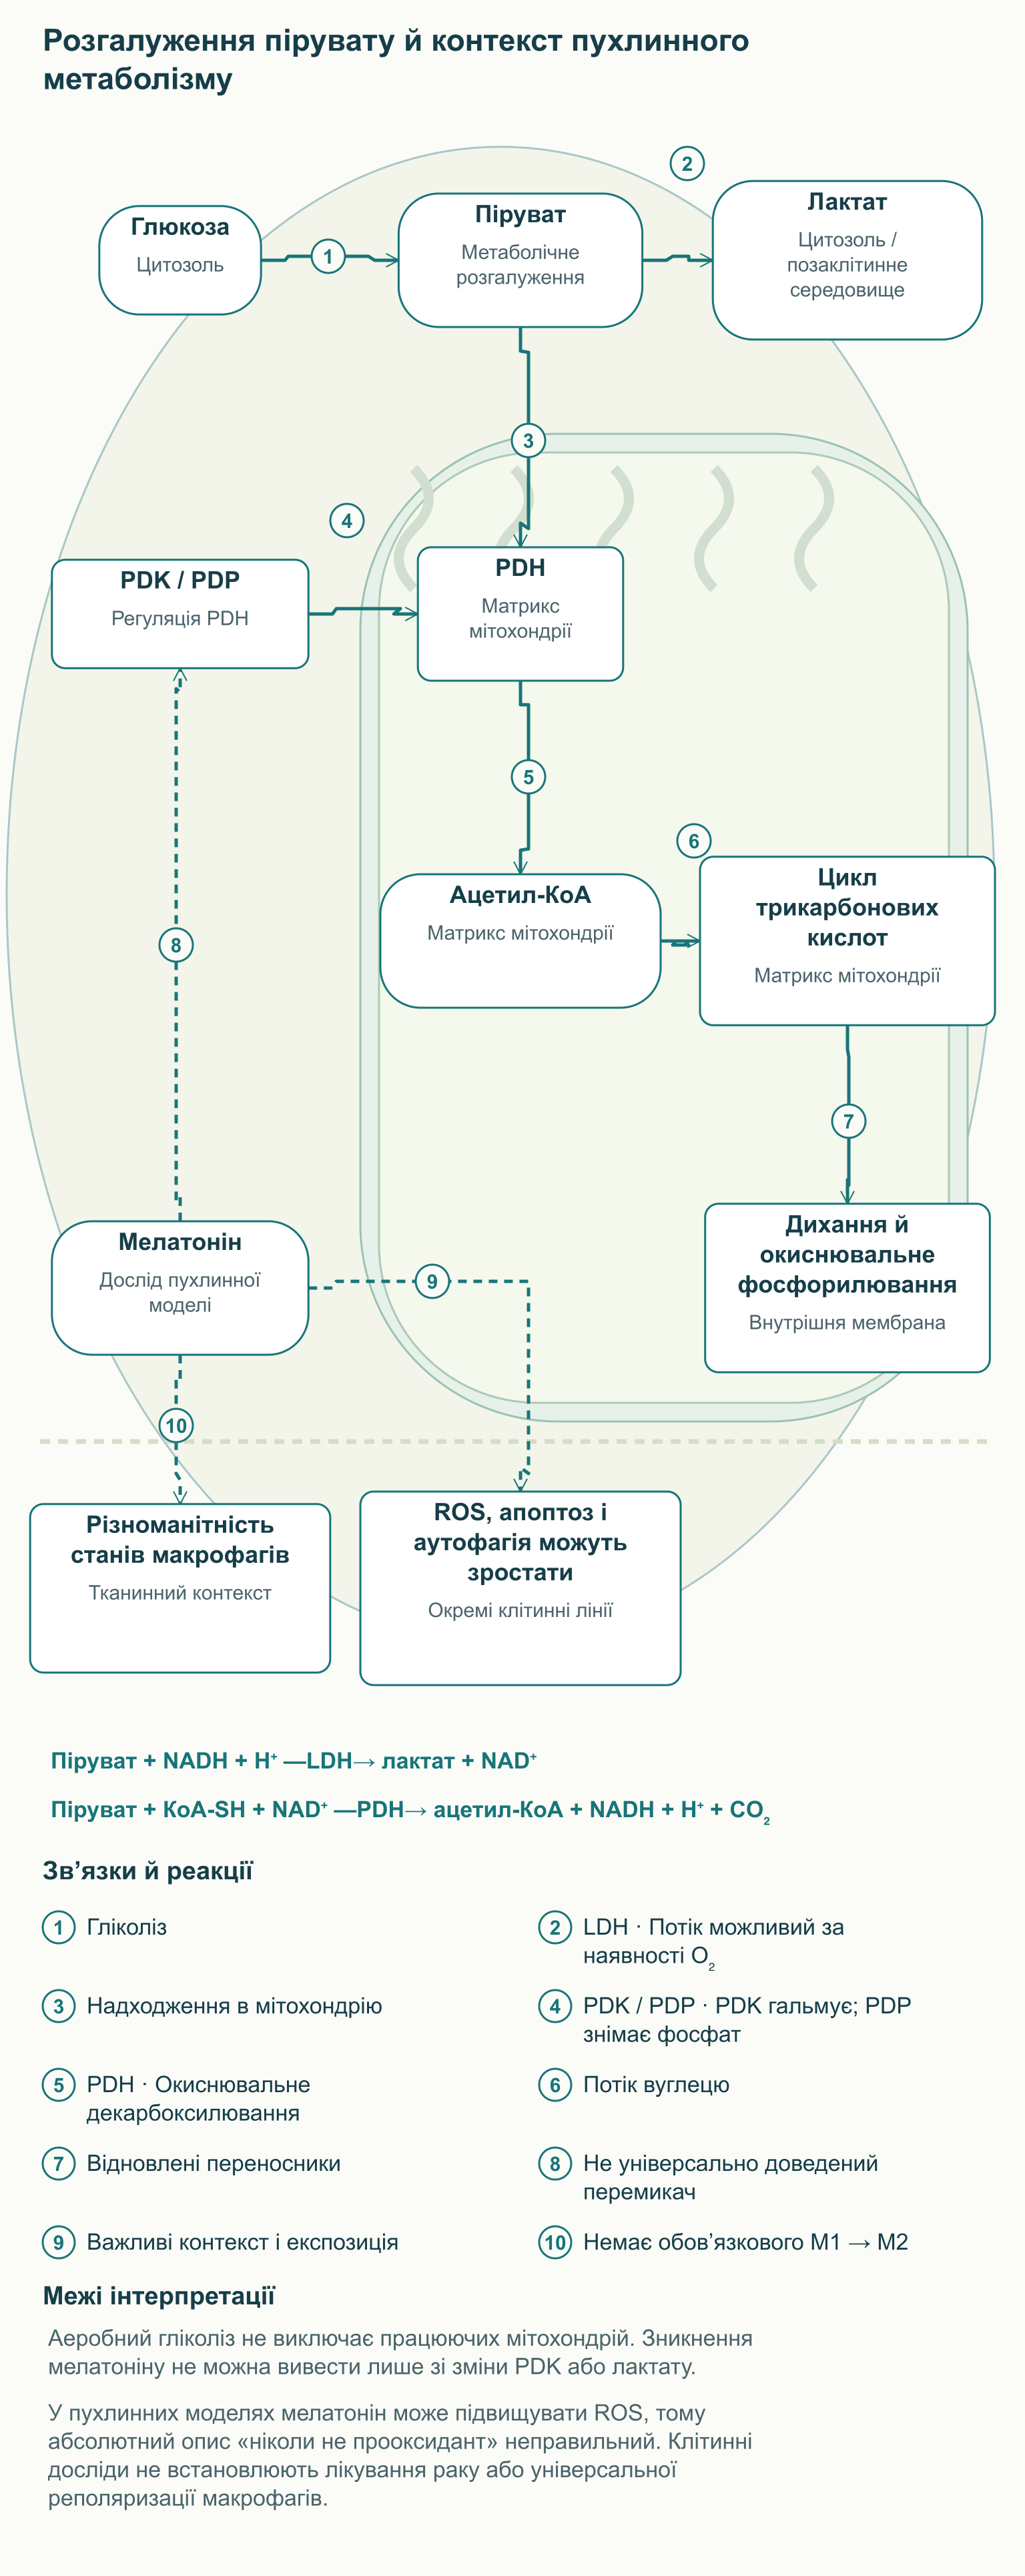
Гіпотеза про відновлення локального синтезу мелатоніну через зміну PDK/PDH залишається окремим дослідницьким питанням. Щоб підтвердити весь ланцюжок, потрібно вимірювати фосфорилювання PDH, потік вуглецю, доступність ацетил-КоА й утворення мелатоніну в тій самій моделі. Спостережуване зниження лактату або зміна експресії PDK не замінює цих вимірювань. Тим більше не можна з таких результатів вивести, що мелатонін універсально «обертає ефект Варбурга» й лікує злоякісні пухлини.
Метаболізм макрофагів теж змінюється за запалення, але поділ на M1 і M2 — спрощена мова експериментальних станів. У тканині існують різноманітні програми, що змінюються з часом і залежать від оточення та пошкодження. У культурах макрофагів описували вплив мелатоніну та його метаболітів на окремі запальні відповіді, включно з COX-2, однак це не означає гарантованого перетворення будь-якого прозапального макрофага на репаративний. Клінічне призначення має спиратися на виміряний результат у пацієнта, а не на ідеалізований перемикач клітинного фенотипу.
Фармакокінетика: чому IR і PR не можна змішувати
Кількість мелатоніну в таблетці не дорівнює кількості, що досягла системного кровотоку. Після приймання всередину речовина всмоктується й проходить виражений пресистемний метаболізм, а експозиція залежить від форми, їжі, індивідуального обміну та супутніх препаратів. У метаболізмі важливий CYP1A2; утворений 6-гідроксимелатонін потім кон’югується, зокрема з утворенням 6-сульфатоксимелатоніну aMT6s. Цей сечовий метаболіт відображає певну частину системного обміну, а не безпосередньо вміст мелатоніну в мітохондріальному матриксі.
Форма негайного вивільнення IR розрахована на швидше надходження, тоді як PR уповільнює вивільнення з лікарської форми. Tmax позначає час досягнення максимальної концентрації, Cmax — сам максимум, а AUC — сумарну експозицію за спостережуваний період. Період напіввиведення характеризує зниження концентрації за певних умов і не тотожний тривалості бажаного клінічного ефекту. У PR триваюче всмоктування також впливає на спостережувану криву, тому «довгий хвіст» не можна пояснювати лише повільною роботою печінки.
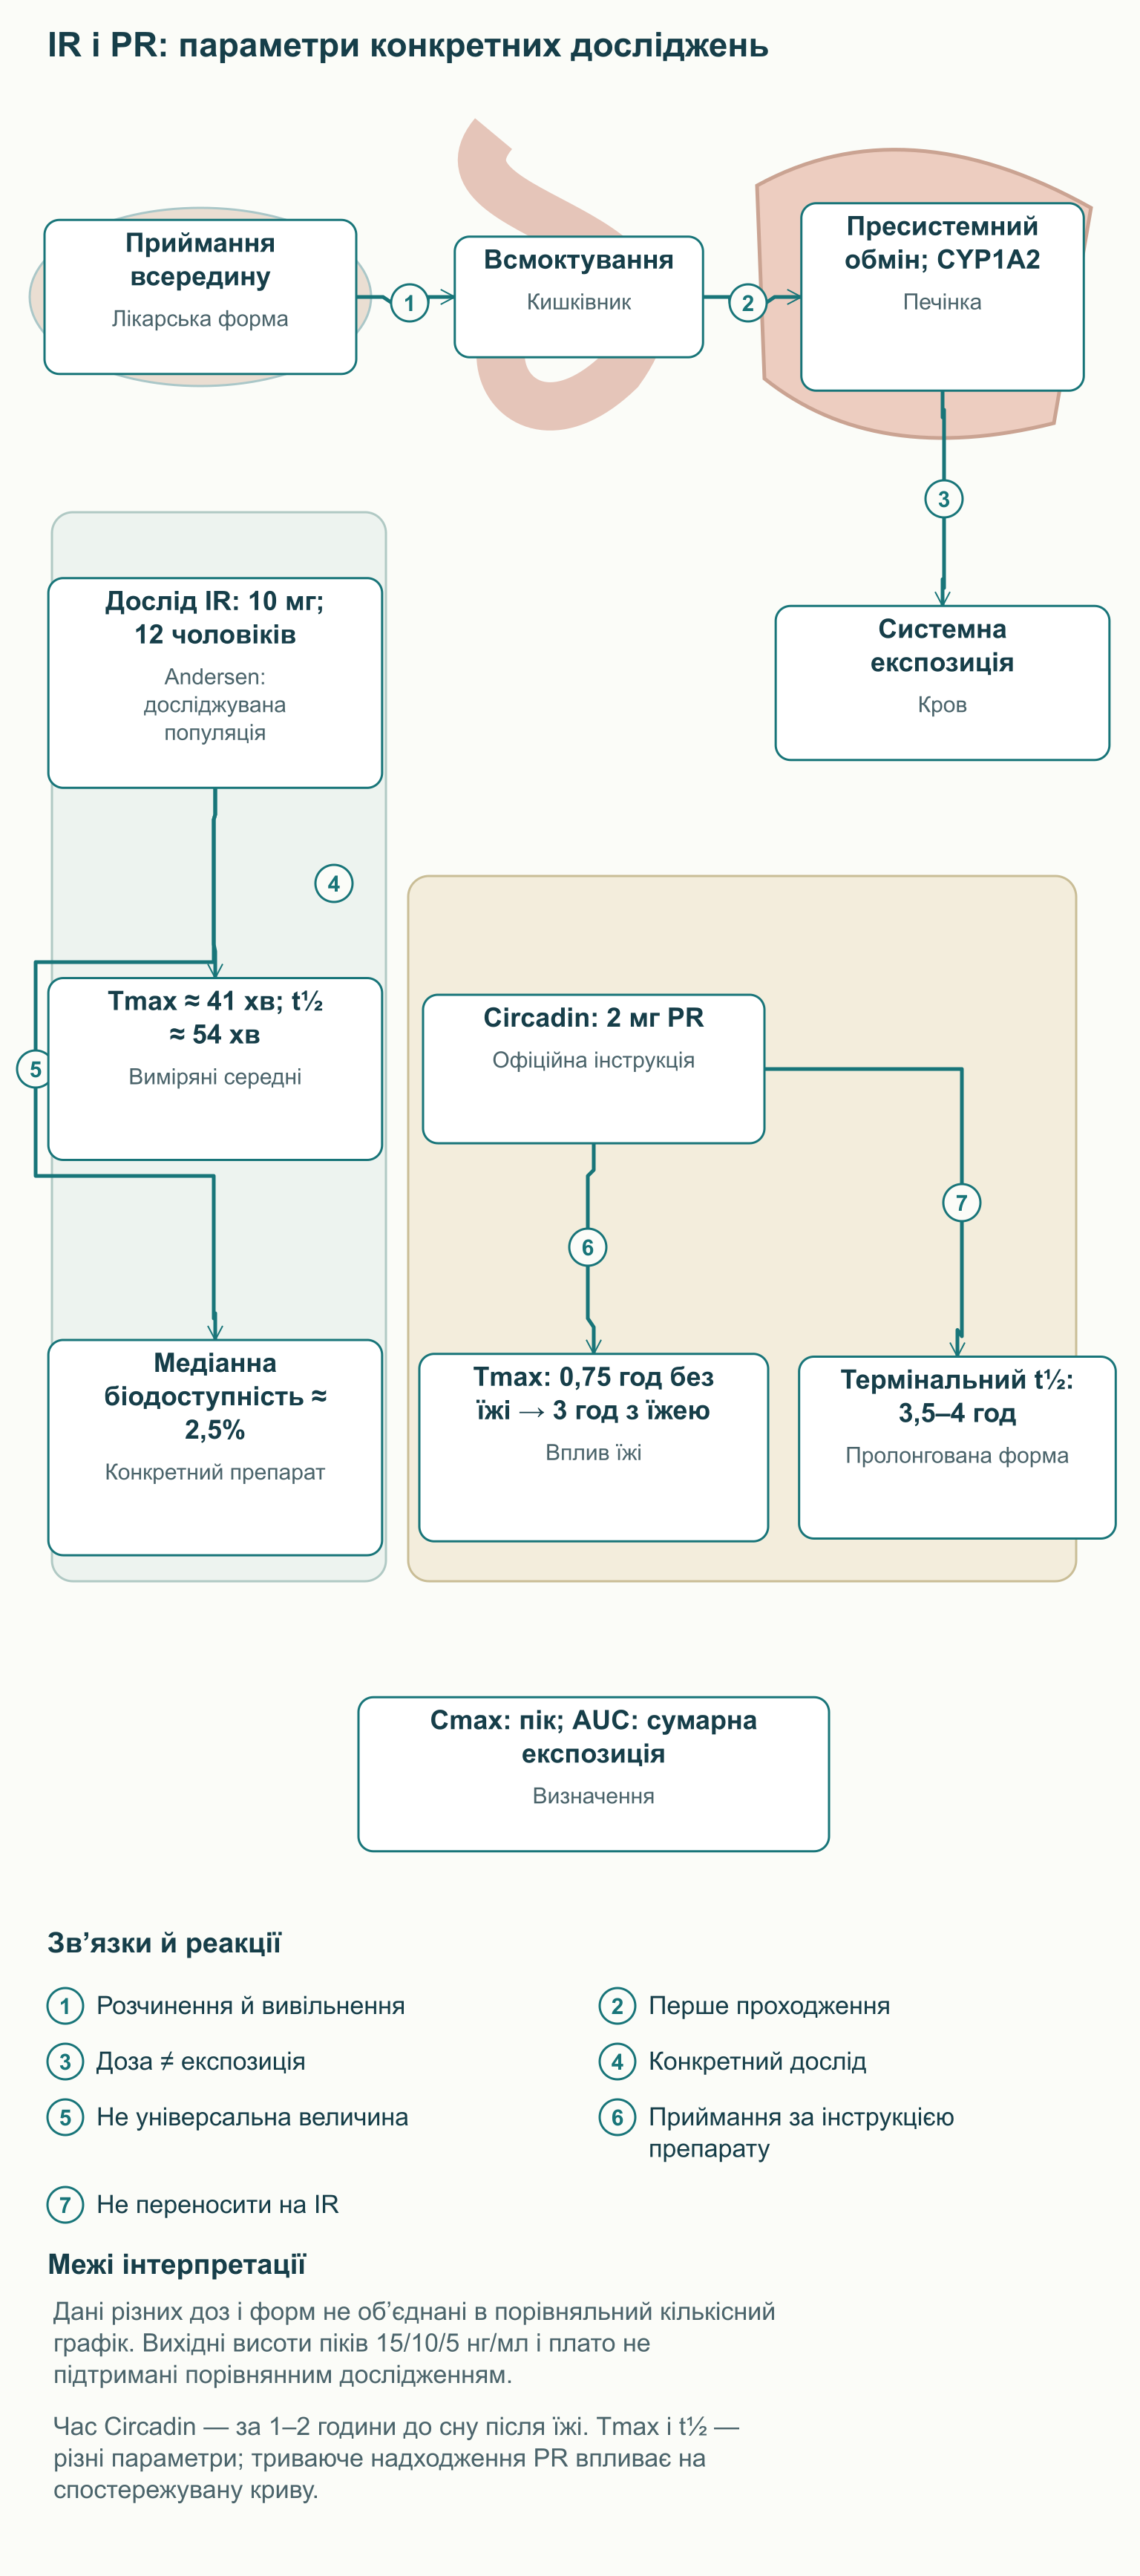
У невеликому дослідженні Andersen та колег 12 здорових чоловіків отримували по 10 мг мелатоніну всередину й внутрішньовенно в різні дні. Для використаного перорального препарату середнє Tmax становило близько 41 хвилини, а середній період напіввиведення — близько 54 хвилин; медіанна абсолютна біодоступність була приблизно 2,5%. Це конкретний фармакокінетичний дослід із високою для хронобіології дозою, а не стандартна експозиція будь-якої добавки. Дослідження також демонструє, чому не можна впевнено малювати однаковий плазмовий пік для кожної людини після тієї самої таблетки.
Для Circadin 2 мг PR інструкція наводить інший профіль: їжа змінює Tmax приблизно з 0,75 до 3 годин, а термінальний період напіввиведення становить близько 3,5–4 годин. Ці відомості стосуються конкретної пролонгованої форми й умов її застосування. Їх не можна об’єднувати з дослідом 10 мг IR в одну кількісну криву «15 нг/мл проти 5 нг/мл» без порівнянного дослідження. На інфографіці тому подано виміряні параметри й чинники впливу, а не вигаданий графік концентрацій із точними, але необґрунтованими висотами.
Мелатонін, MTNR1B і вечірнє навантаження глюкозою
Часовий сигнал ночі перетинається з регуляцією обміну речовин. MTNR1B кодує MT2, а мелатонінова сигналізація в панкреатичних клітинах може впливати на секрецію інсуліну через внутрішньоклітинні посередники. Варіанти цього гена пов’язані з відмінностями показників вуглеводного обміну, але генетична асоціація не доводить, що мелатонін завжди спричиняє діабет. Між короткочасною відповіддю на навантаження, багаторічним ризиком захворювання та ефектом лікарського приймання існують окремі дослідницькі питання.
У рандомізованому перехресному дослідженні Garaulet та колег брали участь 845 людей з іспанської популяції зі звично пізнім харчуванням. Кожен проходив два вечірні тести з 75 г глюкози після восьмигодинного голодування: за чотири години й за одну годину до звичного часу сну. Це стандартизоване пероральне глюкозне навантаження, а не порівняння двох повноцінних вечерь із білком, жиром і клітковиною. Пізній тест збігався з рівнем ендогенного мелатоніну приблизно в 3,5 раза вищим; AUC інсуліну була на 6,7% нижчою, а AUC глюкози — на 8,3% вищою.
Ефект пізнього навантаження на толерантність до глюкози був виразнішим у носіїв G-алеля варіанта MTNR1B. Це підтримує причинно осмислену гіпотезу про збіг високого нічного сигналу з вуглеводним навантаженням, але не встановлює універсального безпечного інтервалу у 2,5–3 години для будь-яких продуктів і форм препарату. У самому досліді не призначали таблетку мелатоніну й не вимірювали виникнення діабету після тривалого лікування. Тому результат не слід перетворювати на заборону всіх пізніх прийомів їжі або на обов’язкове генетичне тестування кожного користувача.
Практично фахівцеві корисно обговорити звичний час сну та їжі, наявність діабету або предіабету й реальну мету застосування мелатоніну. Якщо препарат уже призначений, режим харчування й моніторинг глікемії обирають у контексті захворювання та конкретної лікарської форми. Правило Circadin приймати після їжі не можна механічно скасовувати на підставі досліду з ендогенним мелатоніном та OGTT. За потреби зміни лікування або розкладу мають узгоджуватися як єдина стратегія, а не складатися із суперечливих загальних порад.
Лікарські взаємодії й безпека
Флувоксамін — важливий приклад фармакокінетичної взаємодії. Згідно з інструкцією Circadin, він підвищує AUC мелатоніну приблизно у 17 разів, а Cmax — у 12 разів; такого поєднання слід уникати. Це точні різні показники, тому їх не можна об’єднувати в діапазон «17–70 разів» або супроводжувати вигаданою частотою тяжкої гіпотензії. Значна зміна експозиції потребує уваги навіть тоді, коли початкова таблетована доза здається невеликою.
Інші інгібітори метаболізму, включно з деякими хінолонами, можуть збільшувати експозицію, а естрогени й циметидин також згадуються в інструкції як чинники взаємодії. Натомість карбамазепін, рифампіцин і куріння можуть знижувати рівень через індукцію ферментних систем. Для кожної із цих ситуацій не можна вигадувати однакову кратність зміни без окремого дослідження. Початок або припинення куріння теж може змінювати метаболічний контекст, тому стабільна звична доза не завжди означає стабільну експозицію.
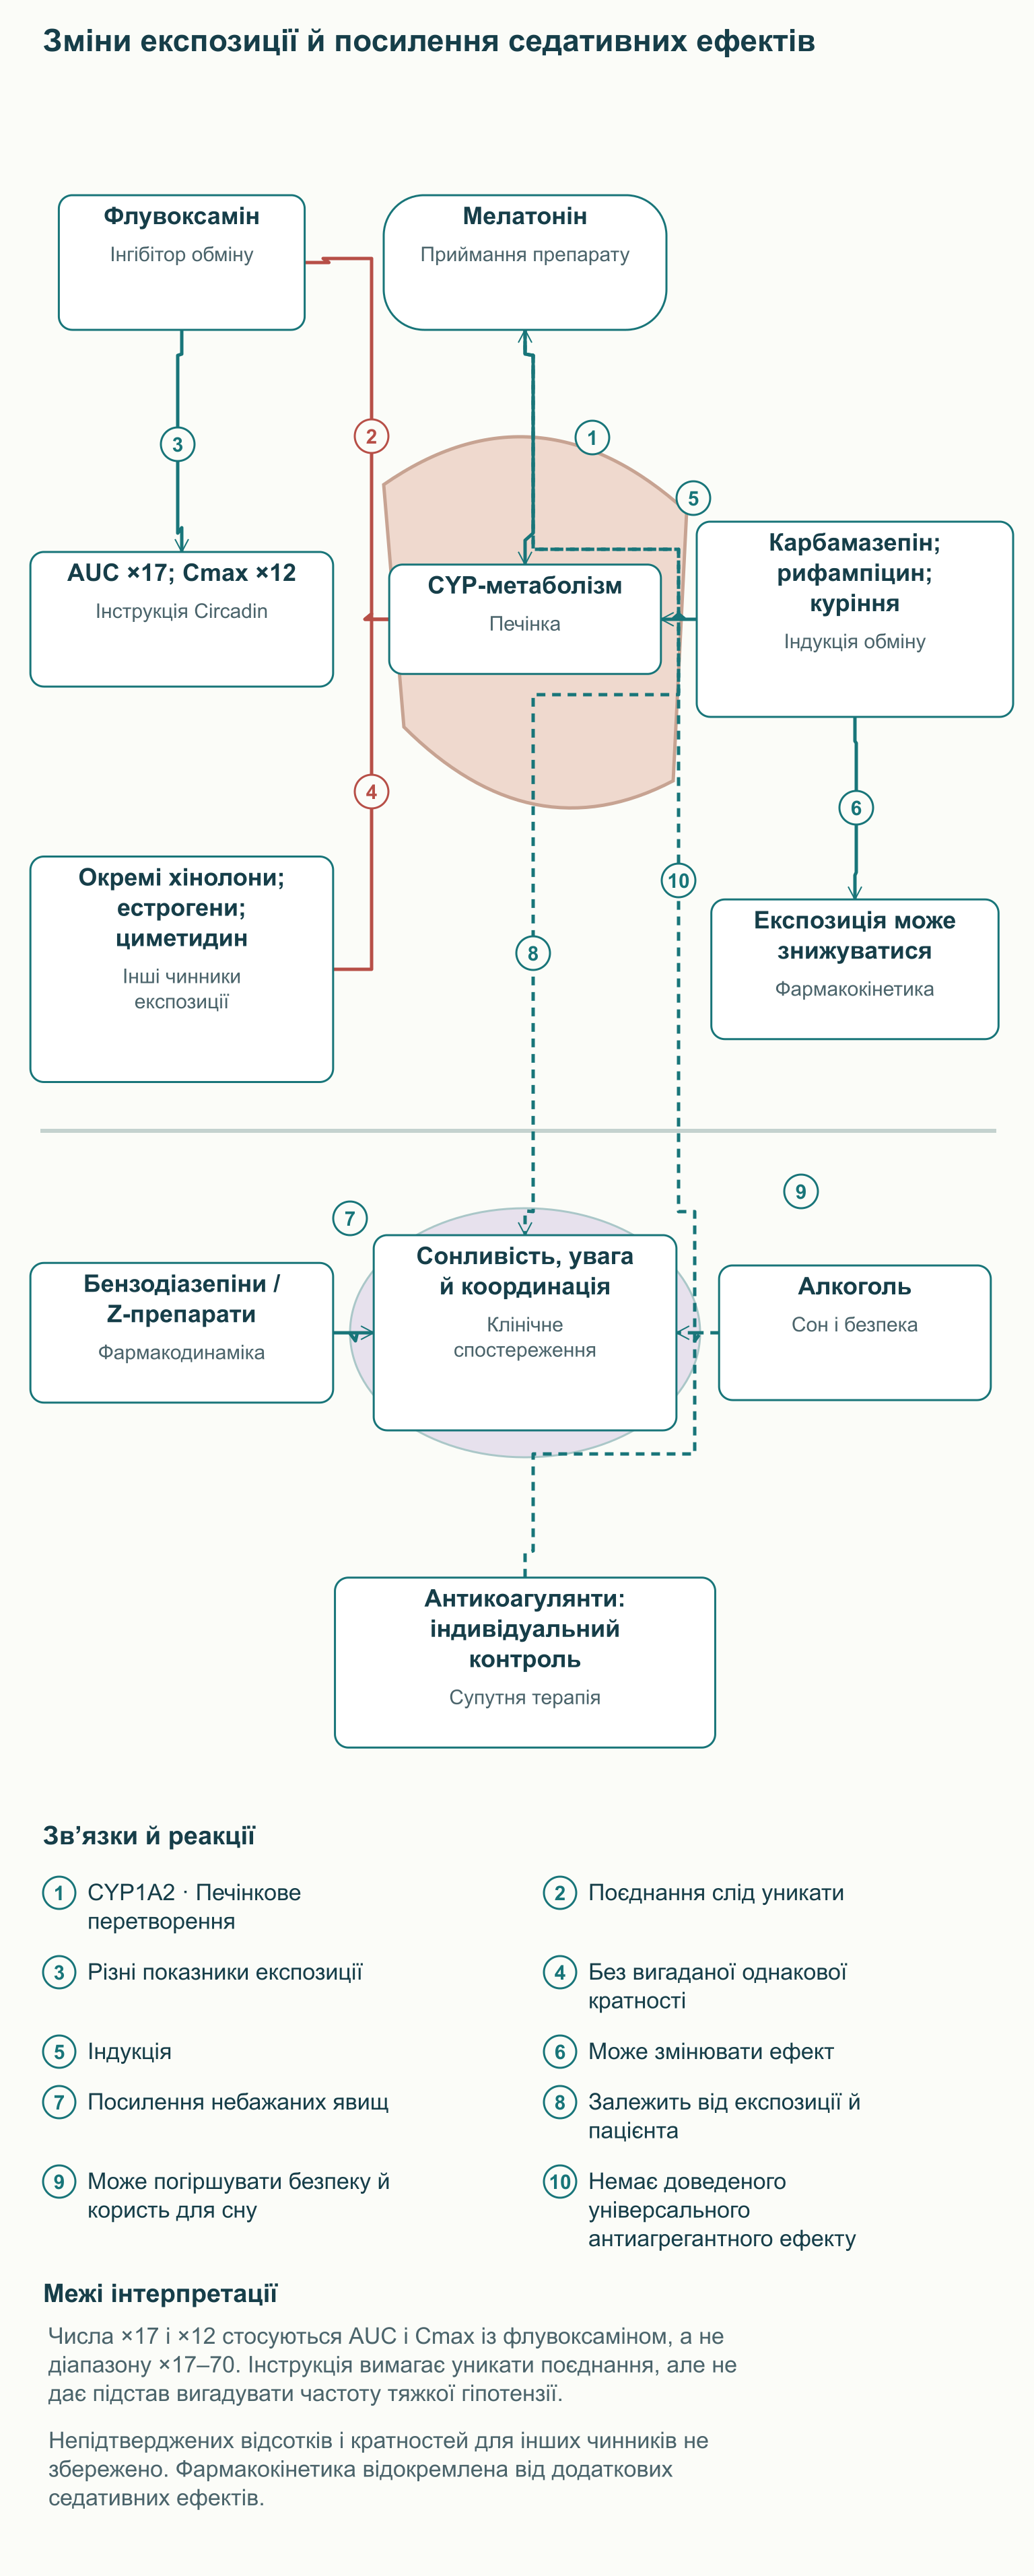
Фармакодинамічна взаємодія відрізняється від зміни концентрації. Бензодіазепіни й деякі снодійні Z-групи можуть посилювати порушення уваги, координації та сонливість у поєднанні з мелатоніном; алкоголь здатний погіршувати очікуваний ефект сну й збільшувати небезпечність поведінки. Для варфарину та інших препаратів, що потребують точного контролю, поєднання обговорюють із лікарем, але мелатонін не слід оголошувати доведеним універсальним антиагрегантом. Причина обережності й план спостереження мають бути конкретними для ліків і пацієнта.
Можливі небажані явища включають сонливість, запаморочення й головний біль, а після приймання важливо враховувати здатність безпечно керувати транспортом. Для Circadin обмежене застосування за захворювань печінки, потрібна обережність за ниркової патології, а брак даних впливає на рекомендації за аутоімунних захворювань. Ця інструкція також не рекомендує застосування під час вагітності й грудного вигодовування через недостатність відповідних даних. Відомості про одну форму не перетворюються на доказ однакової безпеки всіх високих доз, усіх добавок і всіх вікових груп.
Якість продукту має практичне значення, особливо якщо йдеться про добавку з невеликим заявленим вмістом. В аналізі Erland і Saxena комерційних продуктів виявили відхилення вмісту мелатоніну від етикетки від −83% до +478%, а в частині зразків — серотонін. Це дослідження конкретної вибірки ринку, а не твердження, що будь-який сучасний продукт обов’язково має таке відхилення. Але воно показує, чому зареєстрована лікарська форма й надійність виробництва важливі не менше, ніж розрахунок бажаних десятих часток міліграма.
Час приймання: циркадний розлад, безсоння й джетлаг
Хронобіотик змінює фазу біологічного годинника, тоді як безпосередній ефект на засинання — інший результат. DLMO, початок вечірнього підвищення мелатоніну за тьмяного освітлення, є одним із маркерів внутрішньої фази. Крива фазової відповіді PRC показує, як напрямок і величина зсуву залежать від моменту введення відносно цієї фази. Тому однакова доза в різний біологічний час може діяти по-різному, а фіксоване призначення «о 22:00 усім» не є повноцінним хронобіологічним протоколом.
У людському лабораторному дослідженні Burgess та колег порівнювали фазові відповіді на три послідовні дні приймання 0,5 мг із раніше отриманими за тим самим протоколом даними для 3 мг. Обидві дози могли зсувати фазу, але оптимальний час відносно ендогенного ритму відрізнявся. Цей результат пояснює, чому збільшення дози не замінює вибору часу. Він також не означає, що кожен пацієнт має отримувати 0,3 мг рівно за чотири–п’ять годин до сну: час відносно звичного відбою й час відносно DLMO — різні орієнтири.
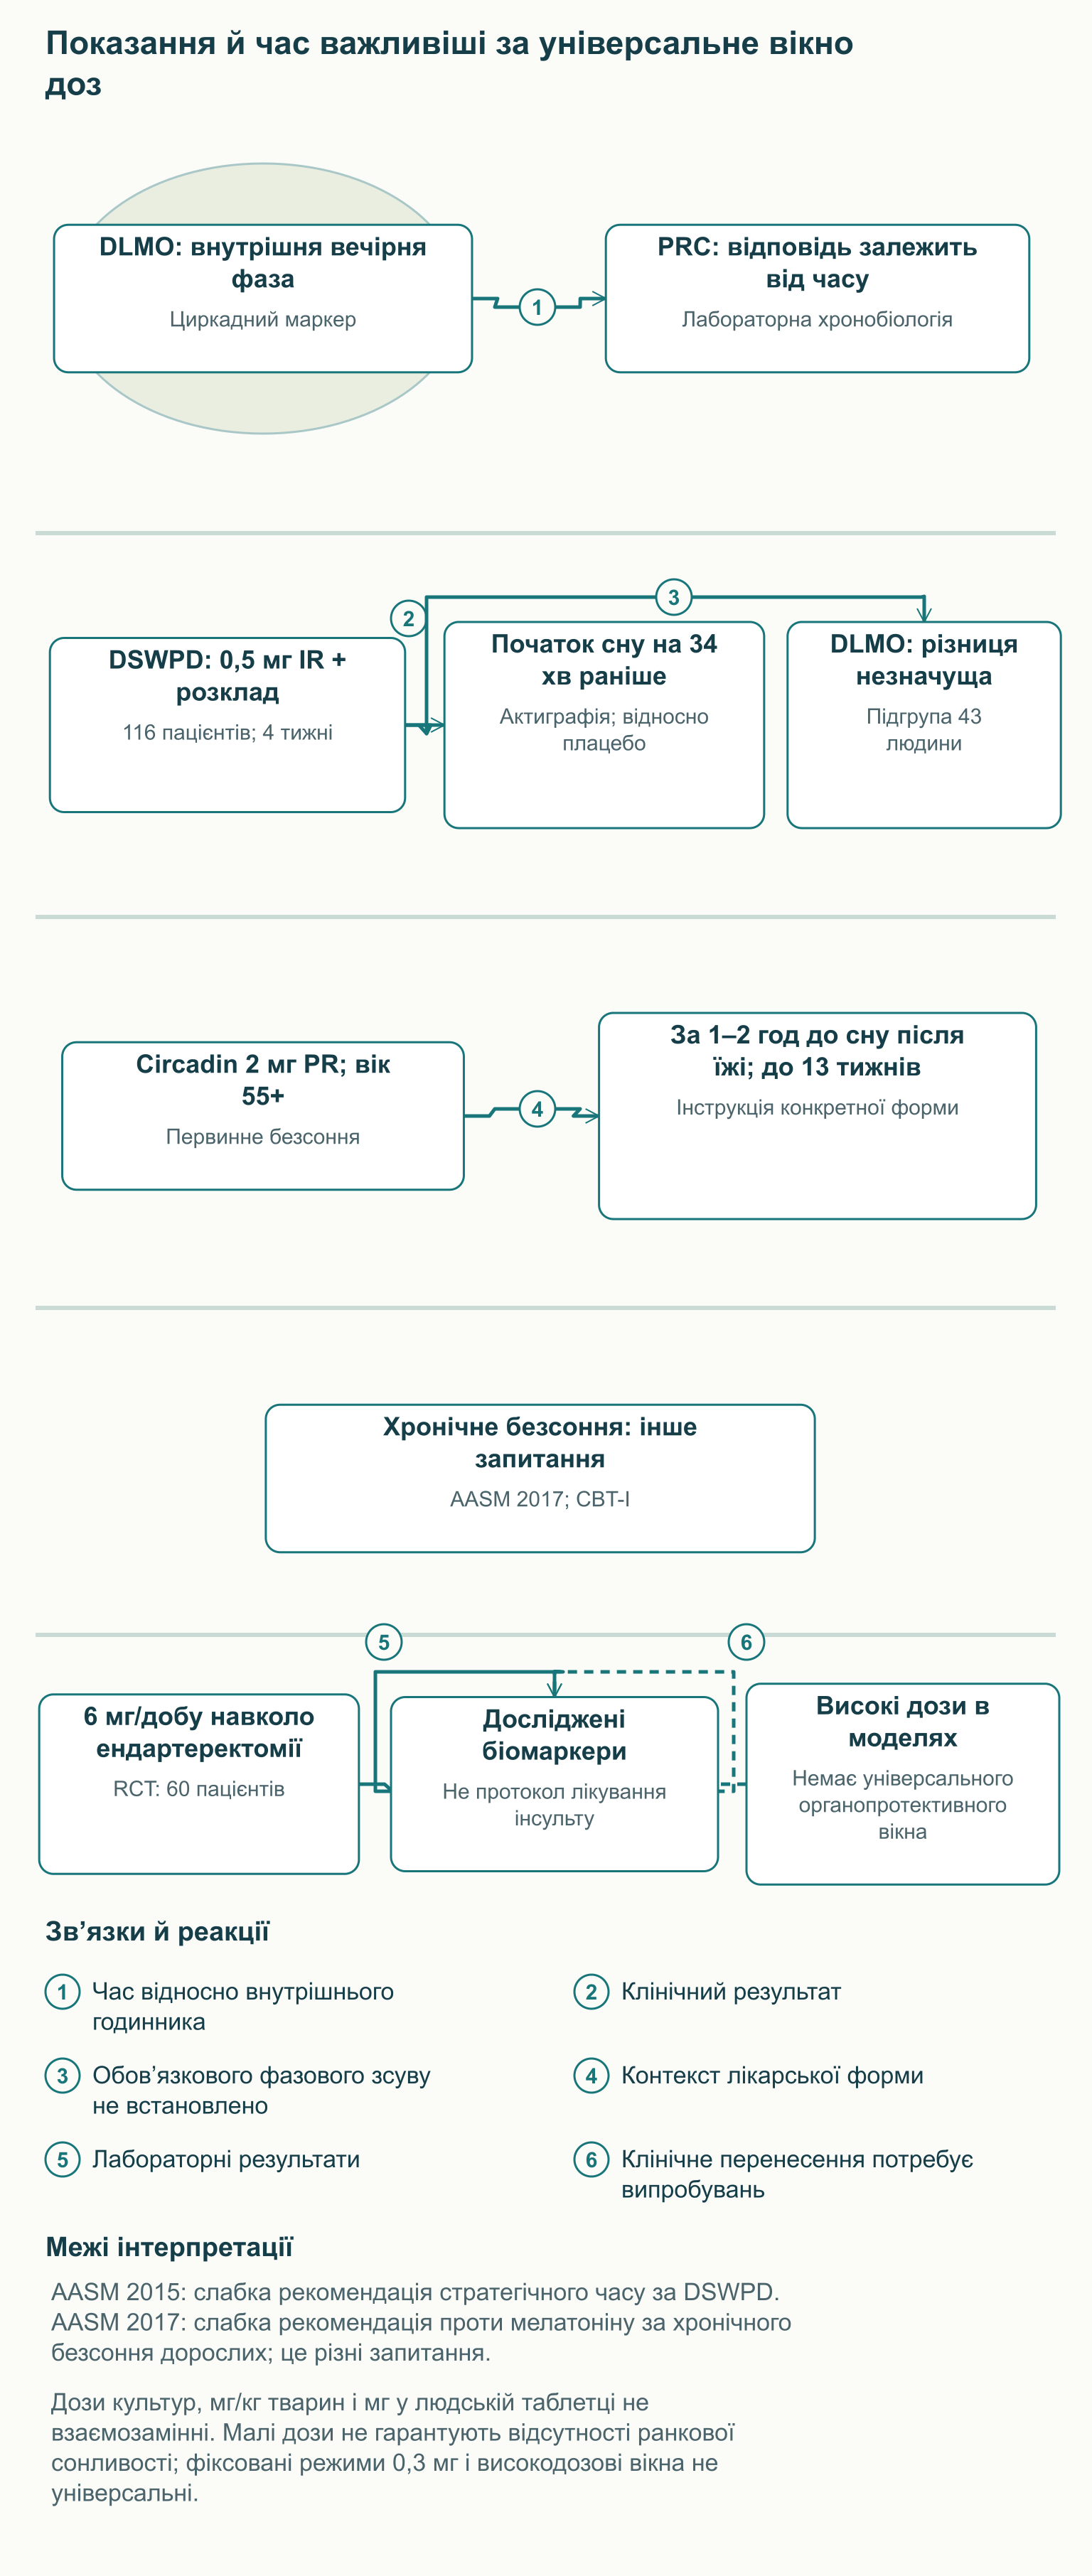
За розладу затримки фази сну й неспання DSWPD людина зазвичай здатна нормально спати за своїм пізнім розкладом, але має труднощі, намагаючись заснути й прокинутися раніше. AASM у настанові 2015 року дала слабку рекомендацію стратегічно розрахованому часу мелатоніну для відповідних пацієнтів. Слабка рекомендація означає обмежену впевненість і потребу враховувати обставини, а не відсутність фізіологічного сенсу. Вона не встановлює єдиної універсальної дози й не поширюється автоматично на будь-яку скаргу «не можу заснути».
У випробуванні Sletten брали участь 116 пацієнтів із DSWPD і підтвердженим запізненням мелатонінового ритму відносно бажаного сну. Вони отримували 0,5 мг швидкого вивільнення або плацебо за одну годину до бажаного часу відходу до сну протягом чотирьох тижнів, разом із поведінковим розкладом. За актиграфією початок сну був на 34 хвилини ранішим відносно плацебо; 95%-й довірчий інтервал відповідав приблизно 8–60 хвилинам ранішого початку. Актиграфія оцінює сон за руховою активністю й не є полісомнографією, тому позначати цей результат як PSG неправильно.
У підгрупі з 43 учасників різниця зміни DLMO між групами не була статистично значущою. Отже, випробування підтримує клінічний ефект цього комбінованого режиму, але не доводить вираженого фазового зсуву в кожного пацієнта. Частина користі могла бути пов’язана з полегшенням засинання в обраний час, а поведінковий розклад входив до обох груп. Тривала ефективність і безпека за межами досліджених чотирьох тижнів цією роботою не встановлювалися.
За хронічного безсоння дорослих клінічне питання інше: сон залишається утрудненим за достатньої можливості й відповідного розкладу. Настанова AASM 2017 року містить слабку рекомендацію проти мелатоніну для лікування порушень засинання або підтримання сну в цьому контексті. Це не скасовує рекомендації для DSWPD і не є забороною всіх зареєстрованих форм у всіх країнах. Для хронічного безсоння AASM окремо рекомендує багатокомпонентну когнітивно-поведінкову терапію CBT-I, яка працює з поведінкою й стійкими механізмами підтримання розладу.
Для джетлага важливі напрямок перельоту, кількість часових поясів, місцевий розклад і світловий режим. Мелатонін досліджували в цьому контексті, але час приймання не можна звести до одного годинного значення незалежно від маршруту. Невідповідний час може давати небажану сонливість або заважати потрібному напрямку адаптації. Практична схема тому має враховувати внутрішній час і запланований режим у пункті призначення, а не лише напис «для подорожей» на упаковці.
Клінічні дози й дослідницька органопротекція
Малі дози мелатоніну можуть створювати значущий сигнальний ефект, оскільки рецепторна система чутлива до низьких концентрацій. Однак термін «фізіологічна доза» залежить від віку, форми й індивідуальної фармакокінетики. У невеликому дослідженні Zhdanova в людей старших за 50 років порівнювали 0,1, 0,3 і 3 мг за 30 хвилин до сну в тижневих періодах із плацебо; було по 15 учасників із нормальним сном і зниженою ефективністю сну. Полісомнографія показала покращення ефективності сну у відповідній групі, а 3 мг могли підтримувати підвищений рівень мелатоніну вдень.
Цей дослід пояснює інтерес до невеликих доз, але не робить 0,3 мг обов’язковим лікуванням будь-якого порушення сну. Його популяція й тривалість відрізняються від дослідження DSWPD і від досліджень пролонгованої форми. Для Circadin зареєстровано режим 2 мг PR за первинного безсоння з поганою якістю сну в пацієнтів від 55 років: за одну–дві години до сну після їжі, до 13 тижнів. Такий режим стосується конкретного препарату й показання; довільна таблетка 2 мг негайного вивільнення не стає його еквівалентом.
Високі дози в дослідженнях клітинного або органного захисту відповідають на інше завдання, але між «хронобіотичним» та «органопротективним» діапазонами немає доведеної універсальної межі. Вміст мелатоніну в крові не встановлює автоматично концентрації біля мітохондріальної мішені. Міліграми на кілограм у миші, мікромолярна концентрація в культурі й міліграми в таблетці людини не є взаємозамінними одиницями експозиції. Припущення про десенситизацію рецепторів за будь-яких 3–10 мг також не слід видавати за клінічне правило без відповідних даних.
У дослідженні Zhao нейропротективну гіпотезу вивчали одночасно в тваринній моделі ішемії-реперфузії та в невеликому рандомізованому випробуванні 60 пацієнтів після каротидної ендартеректомії. У людській частині застосовували 6 мг на добу від трьох днів до операції до трьох днів після неї й оцінювали запальні та окиснювальні біомаркери. Це важливий приклад переходу від моделі до людини, але біомаркери навколо планової судинної операції не рівнозначні доказу лікування гострого інсульту. За цією роботою не можна призначати всім пацієнтам 10–20 мг для запобігання неврологічній інвалідизації.
У мишачих моделях сепсису вивчали також інфламасому NLRP3 — білкову систему, що бере участь у дозріванні запальних сигналів. Порівняння звичайних і генетично змінених тварин дозволяє з’ясовувати внесок NLRP3 та NF-κB у відповідь тканини на пошкодження й введення мелатоніну. У таких дослідах участь функціонального RORα в окремій транскрипційній відповіді не доводить прямого зв’язування мелатоніну із цим ядерним білком. Зміни цих шляхів дають дослідницьке обґрунтування, але не встановлюють стандартної дози для сепсису, ARDS або так званого цитокінового шторму в людини.
Те саме обмеження стосується онкології, сепсису й інших напрямів, де мелатонін досліджується як додаткове втручання. Дози 3–20, 10–40 або 50 мг із різнорідних публікацій не утворюють єдиного доказового протоколу «метаболічного захисту». Для такого протоколу потрібні дані про конкретне захворювання, форму, поєднання зі стандартним лікуванням, клінічні результати й небажані явища. Наявність переконливих клітинних механізмів підтримує дослідження, але не замінює їхніх результатів і не виправдовує відмови від ефективної терапії.
Форми доставки й вибір продукту
Лікарська форма має функцію: керувати швидкістю надходження й відтворюваністю експозиції. Для IR і PR важливо знати не лише дозу, а й правила приймання, вплив їжі та можливість зміни таблетки. Пролонгований препарат зазвичай не можна довільно подрібнювати, якщо це порушує передбачене вивільнення. Якщо потрібен мелатонін із певним профілем, вибір форми має виходити з клінічної мети, а не з припущення, що швидший пік обов’язково корисніший.
| Форма | Що вона змінює | Що потрібно для клінічного висновку |
|---|---|---|
| Пероральна IR | Швидше вивільнення; профіль залежить від продукту | Дослідження потрібної популяції, часу й результату |
| Пероральна PR | Триваліше надходження з лікарської форми | Дані конкретного препарату й дотримання інструкції |
| Сублінгвальна або букальна | Може змінювати шлях всмоктування й пресистемний обмін | Власна фармакокінетика; не можна обіцяти екстрену нейропротекцію |
| Ліпосомальна та інші системи | Потенційно змінює розподіл і стабільність | Дослідження безпеки, доставки й клінічної користі |
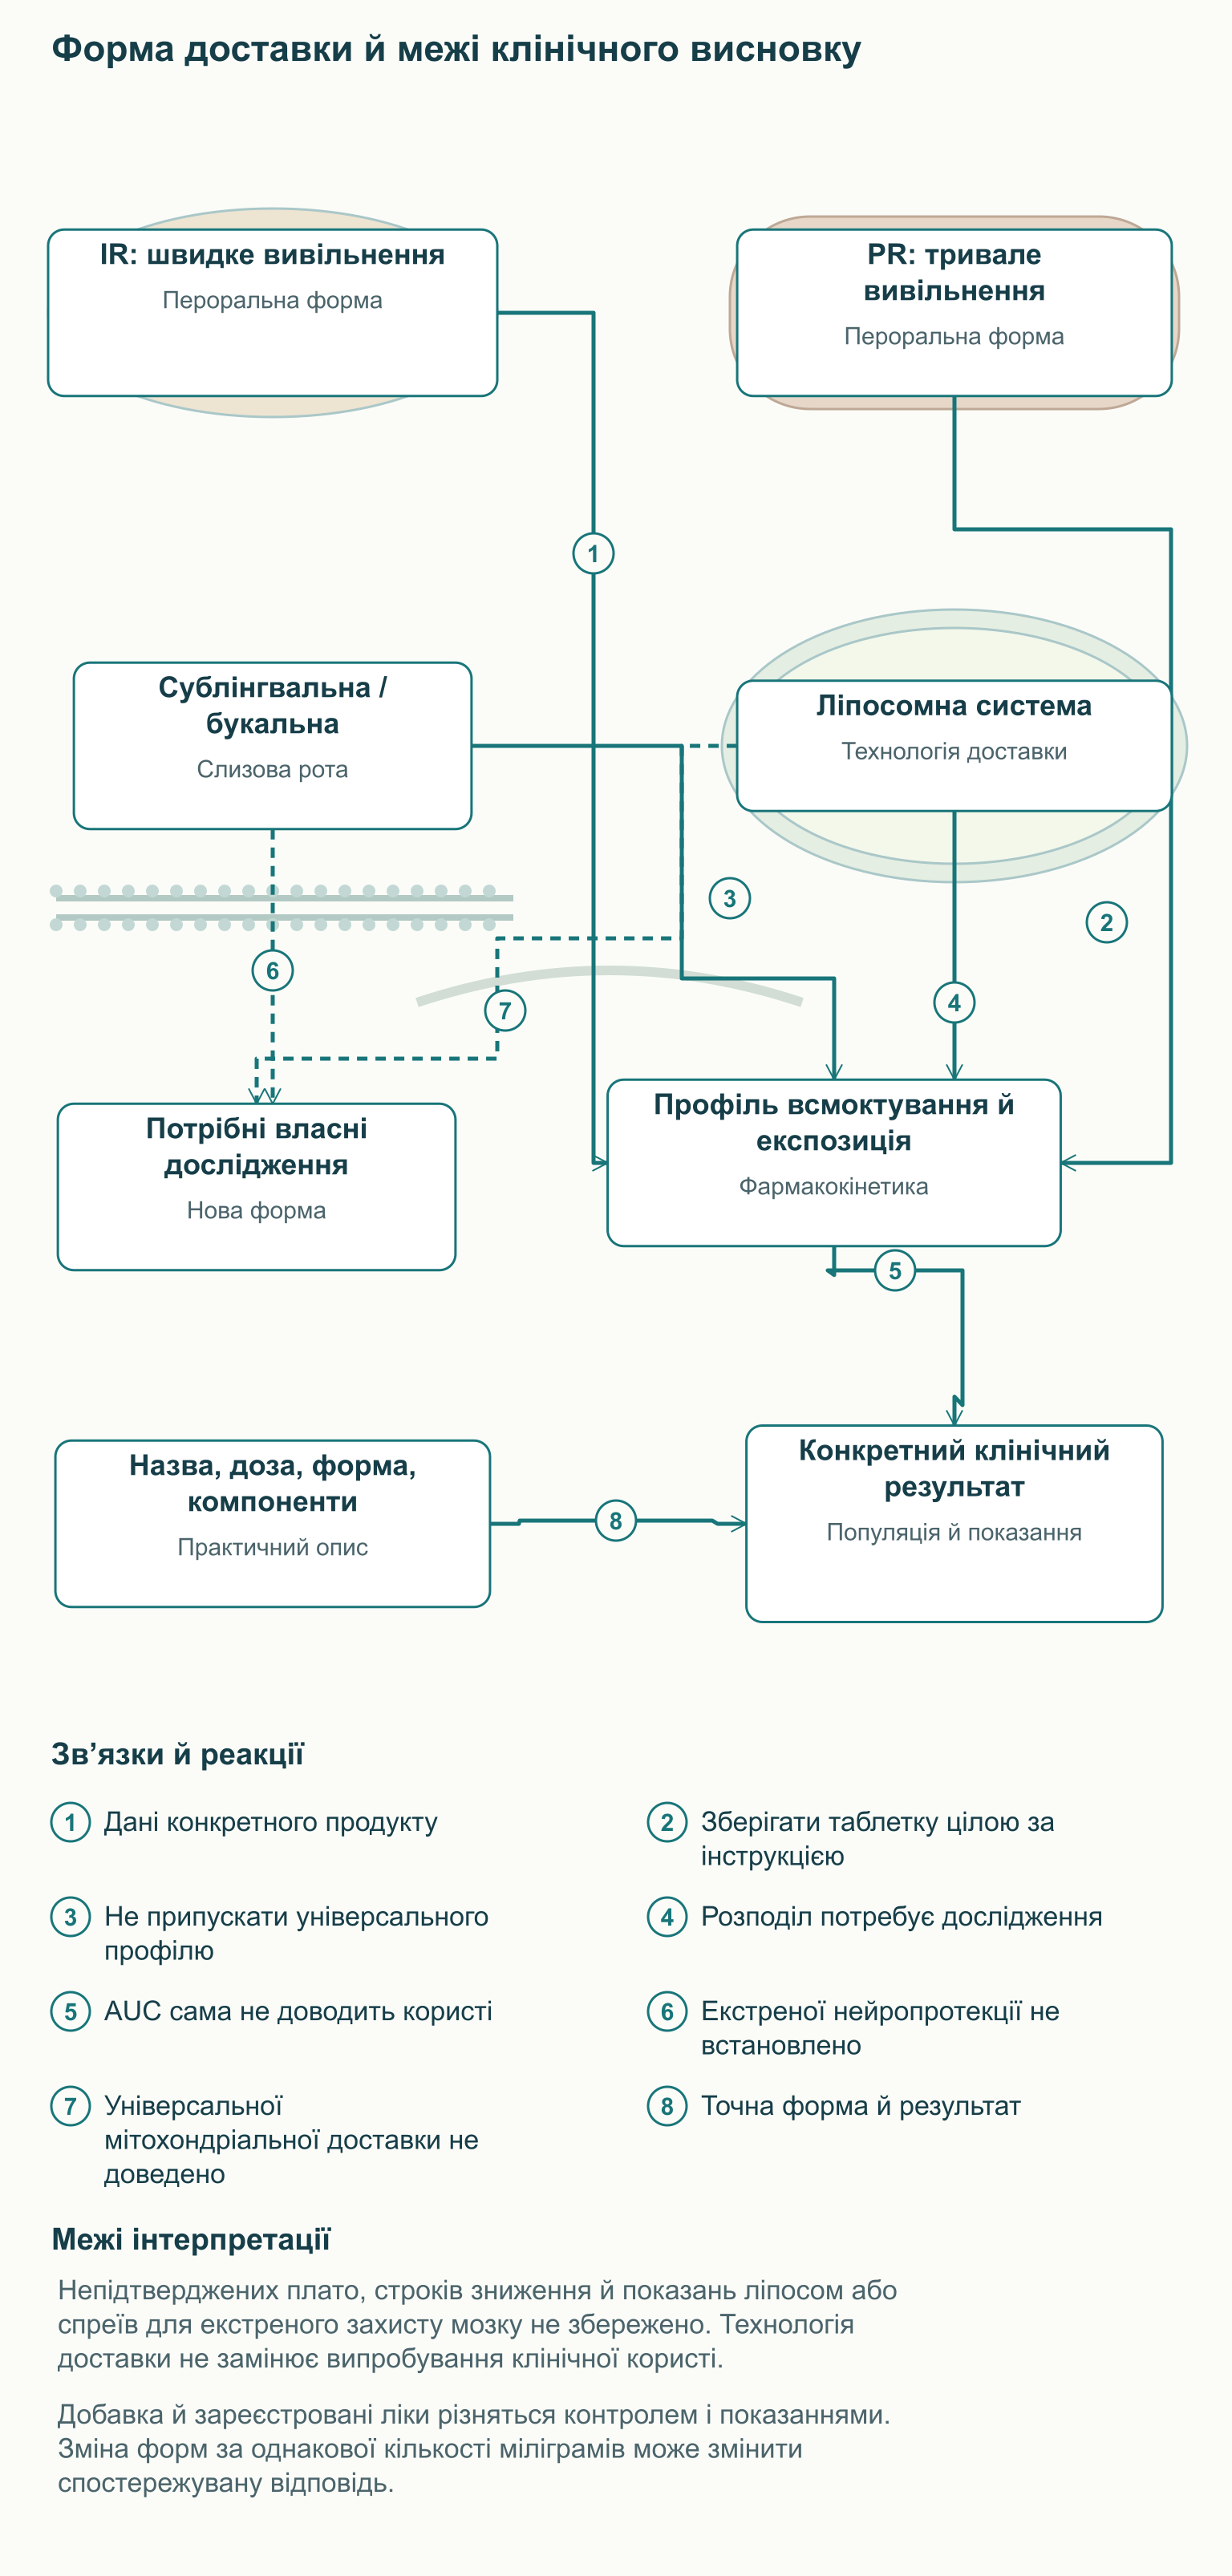
Сублінгвальний спрей або ліпосомальна упаковка не доводять досягнення мозку в захисній концентрації й не перетворюють продукт на засіб екстреної допомоги. Для цього потрібні прямі дані про розподіл, а потім дослідження потрібного клінічного результату. Технологічна новизна може бути цікавою, але окремі етапи розробки не можна пропускати завдяки маркетинговому слову «біодоступний». Навіть помітне збільшення AUC саме по собі не встановлює кращого балансу користі й небажаних ефектів.
Вибір між добавкою та лікарським препаратом залежить також від місцевого регулювання й доступних показань. Для фахівця важливо записувати точну назву, кількість мелатоніну, характер вивільнення та супутні компоненти. У комбінації з рослинними екстрактами або іншими седативними речовинами ефекти вже не можна приписувати одному мелатоніну. Зміна продукту за того самого напису «2 мг» здатна змінити спостережувану відповідь, тому під час оцінки результату потрібно враховувати й форму, й походження препарату.
Лабораторні показники й практичне спостереження
DLMO корисний, коли потрібно уточнити циркадну фазу, але його визначення потребує відповідного протоколу. Зразки слини або крові збирають серійно за контрольованого тьмяного освітлення, починаючи достатньо рано відносно очікуваного підвищення. Частоту забору, допустиму освітленість і поріг початку обирають за методом і завданням лабораторії. Універсальне вікно «19–23 година раз на годину» може пропустити ритм людини з вираженою затримкою, а нещодавнє приймання екзогенного мелатоніну здатне заважати інтерпретації.
Сечовий aMT6s використовують як показник метаболізму мелатоніну за певний інтервал. Результат залежить від часу збору, повноти зразка й способу нормування, включно з поправкою на креатинін у відповідних протоколах. Він не показує безпосередньо, скільки речовини синтезувалося всередині нейрональної мітохондрії. За низьким або високим показником не можна діагностувати універсальний «мітохондріальний дефіцит мелатоніну» й призначати органопротективну дозу.
Малоновий діальдегід, 8-OHdG і співвідношення GSH/GSSG застосовують у дослідницьких питаннях про окиснювальне пошкодження й редокс-стан. Різні методи дають неоднакову специфічність, а обробка зразка сама може змінювати вимірювану величину. Ці показники не утворюють обов’язкової панелі спостереження для звичайного застосування мелатоніну за розладу сну. Глюкозу й HbA1c оцінюють за метаболічними показаннями, а не тому, що будь-якій людині після першої таблетки потрібний розширений лабораторний контроль.
Практична робота починається з опису скарги: бажаного й реального часу сну, нічних пробуджень, денної сонливості, світла, змінної роботи та прийнятих ліків. Щоденник сну допомагає відрізнити стійко пізній ритм від нерегулярного розкладу й оцінити зміни без заміни одного показника іншим. За хропіння із зупинками дихання, вираженої сонливості, депресивних симптомів або інших ознак захворювання потрібна окрема діагностична оцінка. Мелатонін не має приховувати причину, яку можна й потрібно лікувати інакше.
До початку застосування корисно визначити один або кілька конкретних результатів: час засинання, здатність прокидатися за потрібним розкладом, якість сну й денне функціонування. Потім оцінюють дотримання часу, форму препарату, переносимість і зв’язок змін із поведінковим режимом. Якщо результату немає, механістична обіцянка «захисту мітохондрій» не є підставою нескінченно збільшувати дозу. Узгоджене рішення про продовження, зміну або припинення приймання спирається на показання та спостережувану відповідь, зберігаючи відмінність між цікавою біологією й доведеною клінічною користю.
Часті питання
Чи справді мелатонін утворюється лише в епіфізі?
Ні. Мелатонін і ферментні системи виявлено поза епіфізом, зокрема в тканинних і мітохондріальних моделях. Однак дані не дозволяють підрахувати універсальні людські частки 5% і 95%. Циркулюючий нічний сигнал і локальні вимірювання потребують різних способів інтерпретації.
Чи можна за аналізом крові визначити мітохондріальний запас мелатоніну?
Аналіз крові або слини описує вимірюваний системний сигнал у певний час. Сечовий aMT6s відображає частину метаболізму за період збору. Жоден із цих показників не вимірює безпосередньо мелатонін у матриксі нейрональної мітохондрії.
Чому за затримки фази важливіший час, ніж збільшення дози?
Фазова відповідь залежить від моменту впливу відносно внутрішнього годинника, тому однакова доза в різний час може давати різні зсуви. За DSWPD застосовують стратегічно обраний час разом із розкладом і світловим режимом. Його не можна звести до однієї години приймання для всіх.
Чим відрізняються 0,5 мг IR і 2 мг PR?
Вони різняться не лише кількістю, а й вивільненням, експозицією та дослідженими показаннями. Режим 0,5 мг у випробуванні DSWPD не можна підміняти інструкцією Circadin 2 мг PR для пацієнтів від 55 років. Форму й час обирають за клінічною метою та даними конкретного препарату.
Чи всім потрібно залишати три години між їжею та мелатоніном?
Універсального інтервалу не встановлено. Дослідження 845 людей порівнювало два моменти навантаження 75 г глюкози за різного ендогенного мелатоніну, а не всі вечері й усі препарати. За діабету та призначеного лікування розклад узгоджують індивідуально, враховуючи також інструкцію форми.
Чи можна використовувати мелатонін для екстреного захисту мозку?
Експериментальні ефекти на редокс-шляхи, рецептори й загибель клітини не встановлюють ефективності таблетки або спрею за гострого інсульту. Невеликі дослідження біомаркерів навколо операції не замінюють випробувань функціональних результатів. За ознак інсульту потрібна негайна стандартна медична допомога.
Які поєднання особливо важливі?
Флувоксамін значно підвищує експозицію мелатоніну, і інструкція Circadin радить уникати поєднання. Седативні ліки можуть посилювати сонливість і порушення координації. Індуктори та інгібітори ферментів, антикоагулянти й супутні захворювання потребують обговорення конкретної схеми.
Чи обов’язкова антиоксидантна лабораторна панель під час застосування?
Обов’язкової панелі MDA, 8-OHdG і GSH/GSSG для звичайного застосування за розладу сну не встановлено. Ці показники частіше відповідають на дослідницькі запитання й залежать від методу. Спостереження насамперед враховує показання, час сну, денне функціонування, переносимість і клінічно обґрунтовані вимірювання.
Джерела
- Suofu et al., 2017. Dual role of mitochondria in producing melatonin and driving GPCR signaling to block cytochrome c release
- AEMPS. Circadin 2 mg comprimidos de liberación prolongada: ficha técnica
- EMA. Circadin: European public assessment report
- AASM, 2015. Clinical practice guideline for the treatment of intrinsic circadian rhythm sleep-wake disorders
- AASM, 2017. Clinical practice guideline for the pharmacologic treatment of chronic insomnia in adults
- Edinger et al., 2021. Behavioral and psychological treatments for chronic insomnia disorder in adults: an American Academy of Sleep Medicine clinical practice guideline
- Sletten et al., 2018. Efficacy of melatonin with behavioural sleep-wake scheduling for delayed sleep-wake phase disorder: A double-blind, randomised clinical trial
- Garaulet et al., 2022. Interplay of Dinner Timing and MTNR1B Type 2 Diabetes Risk Variant on Glucose Tolerance and Insulin Secretion: A Randomized Crossover Trial
- Garaulet et al., 2015. Common type 2 diabetes-risk variant in MTNR1B worsens the deleterious effect of melatonin on glucose tolerance in humans
- Zhdanova et al., 2001. Melatonin treatment for age-related insomnia
- Burgess et al., 2010. Human Phase Response Curves to Three Days of Daily Melatonin: 0.5 mg Versus 3.0 mg