Melatonina: mitocondrias, receptores y uso clínico — NutriFit
Melatonina: mitocondrias, receptores circadianos y uso clínico
Análisis profundo de la síntesis de melatonina, MT1/MT2 y señalización mitocondrial, química redox, muerte celular y cronobiología clínica. Los estudios humanos de sueño y metabolismo de glucosa se distinguen de modelos de neuroprotección; se explican formulaciones, interacciones y límites de los indicadores de laboratorio.
La melatonina se conoce sobre todo como una señal de la noche biológica, pero su biología no termina en la glándula pineal ni en conciliar el sueño. La N-acetil-5-metoxitriptamina se detecta en distintos tejidos y, en sistemas experimentales, participa en reacciones químicas con especies reactivas de oxígeno y nitrógeno, modifica señales celulares y afecta al funcionamiento de las mitocondrias. Estas líneas están relacionadas, pero responden a preguntas diferentes: dónde se produce la molécula, con qué diana interactúa y si tomarla mejora un resultado concreto en seres humanos. Para el profesional es especialmente importante no sustituir la última pregunta por una imagen convincente de las dos primeras.
Este artículo conecta la ruta del triptófano a la melatonina con la arquitectura de las membranas, la transmisión de señales por receptores, la química redox y la cronobiología clínica. Los experimentos mitocondriales se consideran en su propia escala, mientras que los estudios del sueño y del metabolismo de la glucosa se describen con su formulación, dosis, población y método de medición. Este enfoque permite explicar una posible protección celular sin convertirla en un protocolo no demostrado para tratar el ictus, el cáncer o una «deficiencia mitocondrial». La utilidad práctica de la melatonina depende de la indicación, el momento de administración y la formulación, y no del número de mecanismos moleculares enumerados.
Hipótesis evolutiva y función actual de la señal nocturna
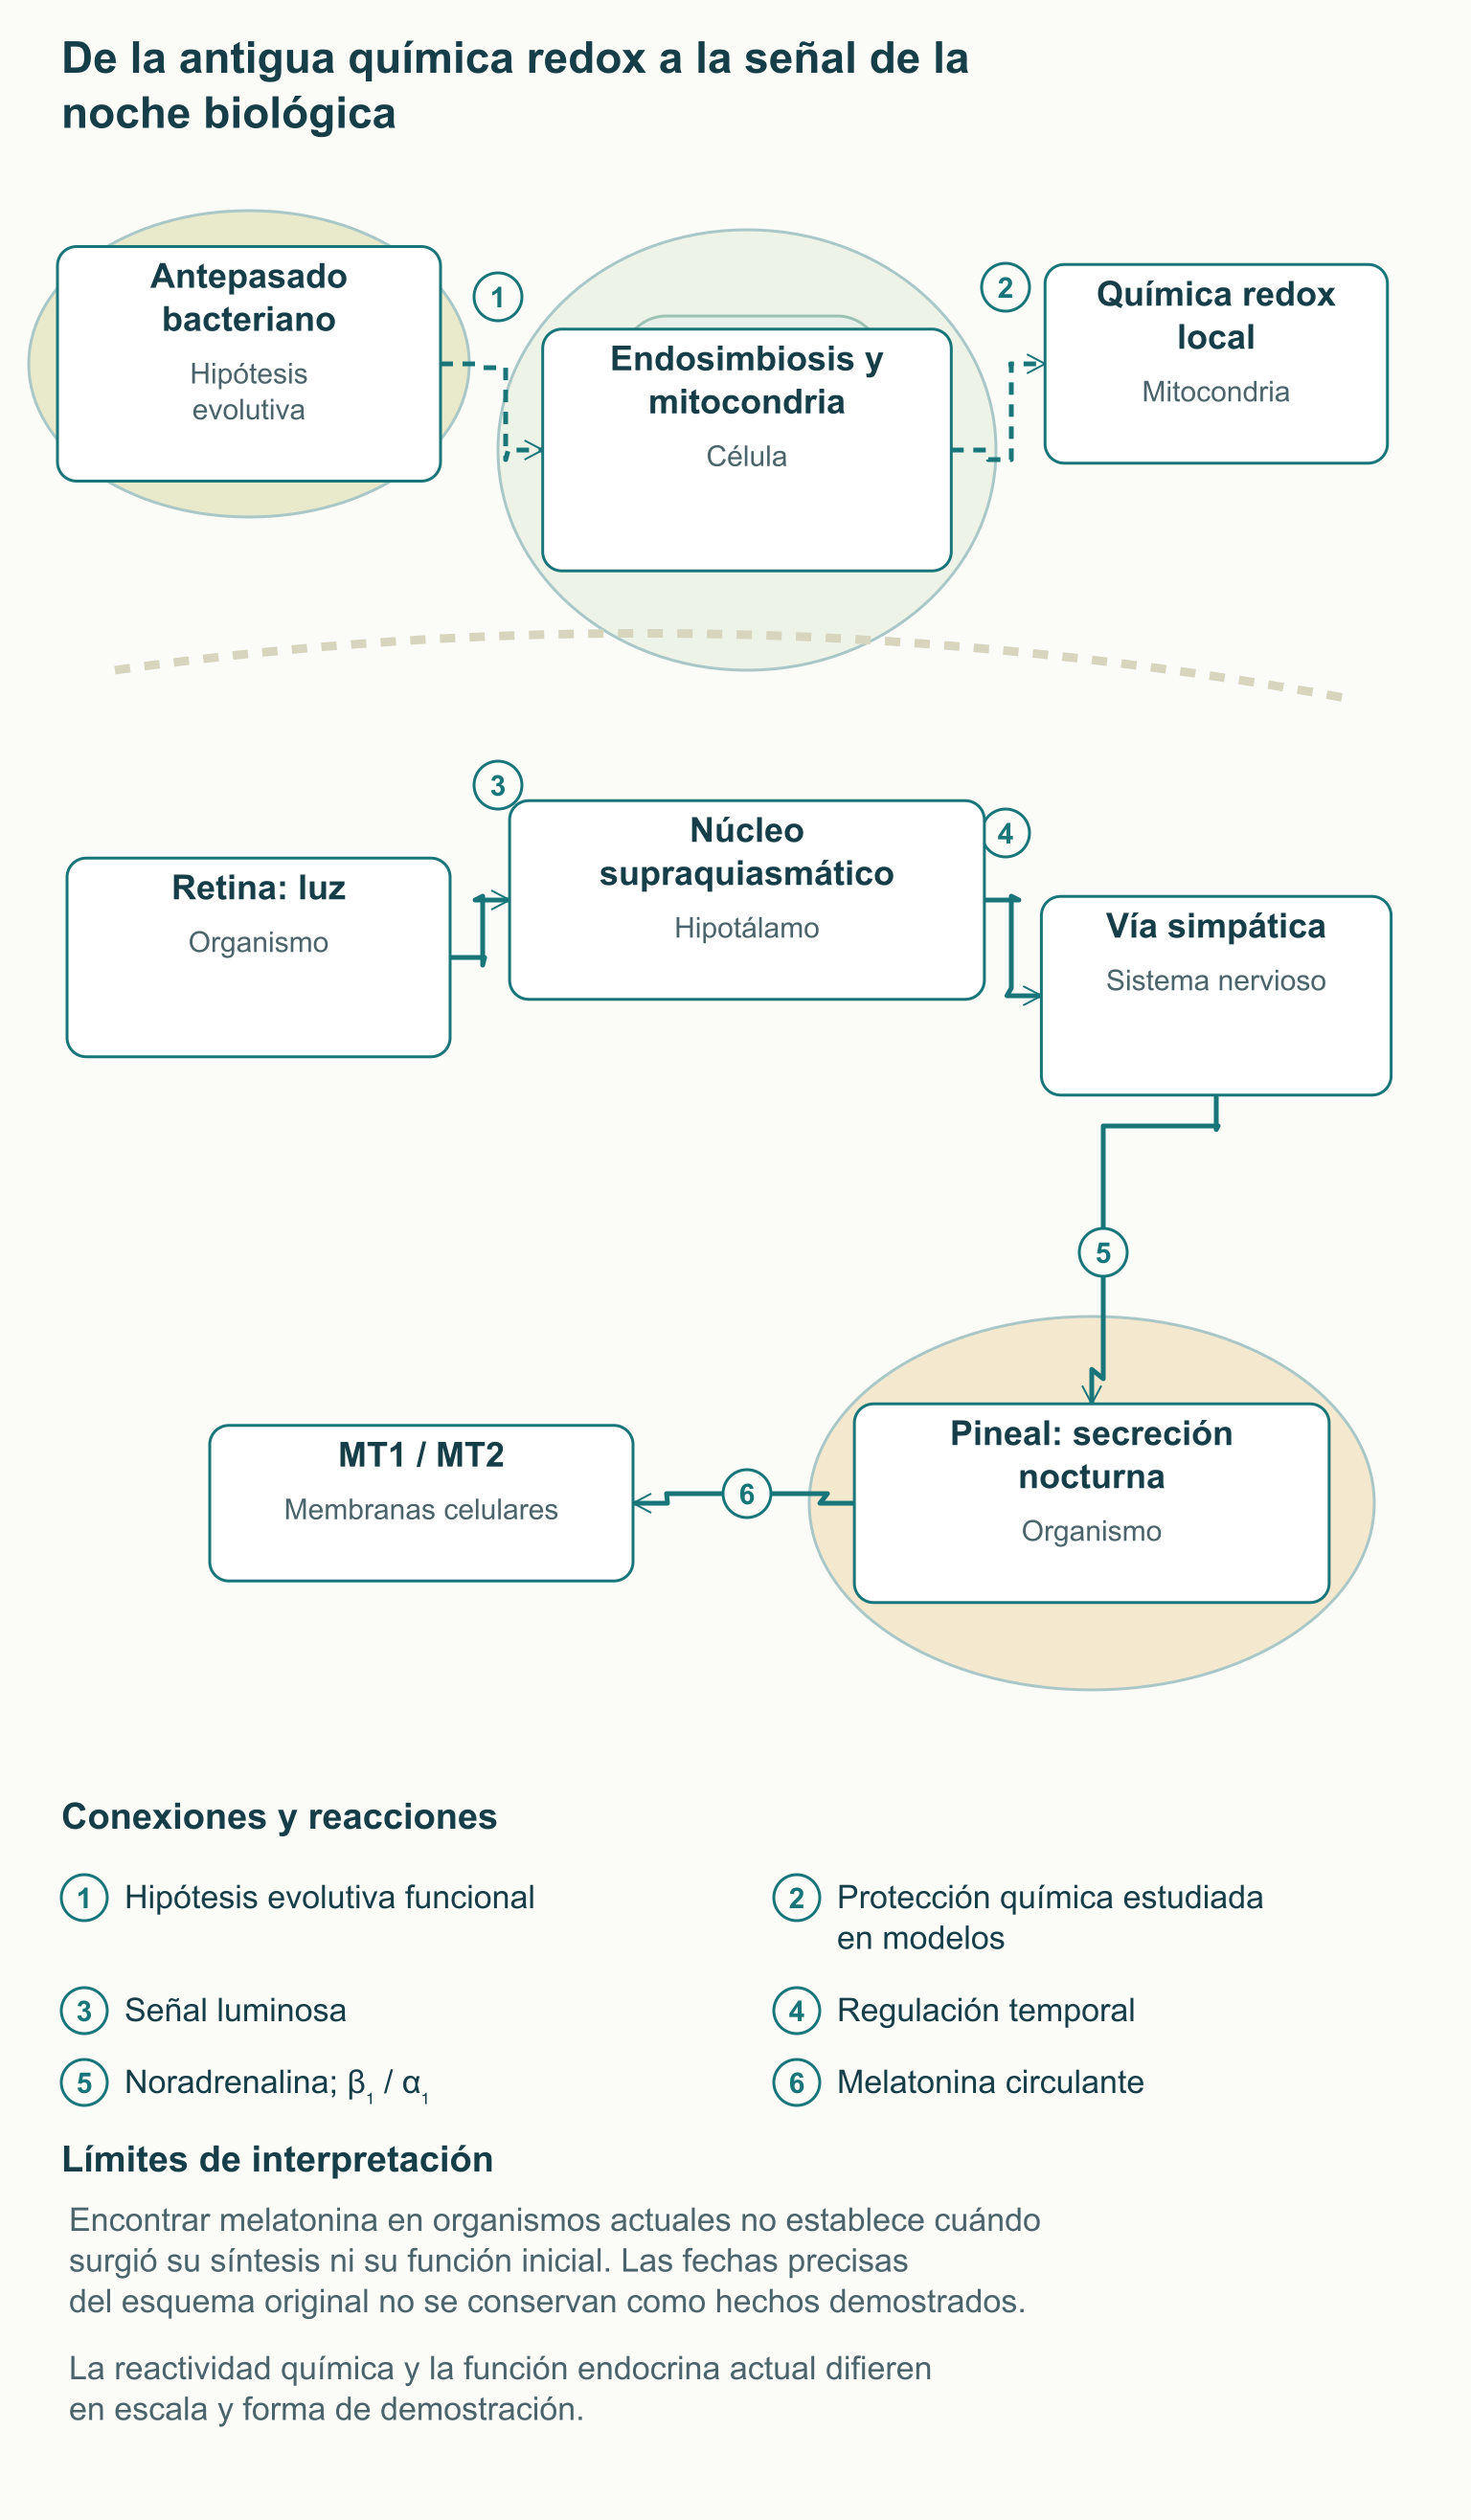
Las mitocondrias proceden de un antepasado bacteriano y su cadena respiratoria conserva una relación con esa historia evolutiva. La transferencia de electrones al oxígeno permite obtener energía, pero algunos electrones pueden desviarse hacia la formación de superóxido, por lo que la célula necesita sistemas de control de las reacciones oxidativas. La distribución de la melatonina más allá de los vertebrados hace plausible la hipótesis de una antigua función protectora de carácter químico. Sin embargo, detectar una sustancia en organismos actuales no permite por sí solo fechar el origen de su síntesis ni establecer cuál fue su primera función biológica.
Por eso resulta demasiado categórico afirmar que la melatonina apareció exactamente hace 2.500 millones de años y adquirió su función endocrina exactamente hace 500 millones. Ese calendario requeriría pruebas evolutivas independientes, en vez de trasladar la antigüedad de los cambios del oxígeno terrestre a un sistema enzimático concreto. Una reconstrucción más cuidadosa relaciona la antigua química redox de los compuestos indólicos con la posterior especialización de las vías de señalización en animales. El esquema presenta estos acontecimientos como una hipótesis de desarrollo funcional, sin fechas no demostradas y sin afirmar que todos los antepasados carecían de cualquier diana receptora.
En el ser humano, la secreción pineal genera una señal temporal que ayuda al organismo a distinguir el día y la noche biológicos. La información sobre la iluminación pasa de la retina al núcleo supraquiasmático del hipotálamo y después llega a la pineal a través de estructuras nerviosas intermedias y de una vía simpática. En esta cadena intervienen la región paraventricular, las neuronas simpáticas espinales y el ganglio cervical superior; la noradrenalina actúa sobre los adrenoceptores β₁ y α₁ de los pinealocitos. Por la noche, este mecanismo favorece la síntesis de melatonina, mientras que la luz durante la noche biológica puede suprimir su secreción y modificar la fase circadiana.
El sueño también depende de la presión de sueño acumulada, la conducta, las enfermedades y el entorno, de modo que la señal hormonal nocturna no equivale a un interruptor de la conciencia. Una persona puede permanecer despierta con melatonina endógena elevada o sentir somnolencia cuando su concentración es baja. Por ello, aumentar la cantidad de hormona no siempre elimina la causa del insomnio. Para comprender la queja hay que distinguir la falta de oportunidad para dormir, la dificultad para dormir con un horario adecuado y la discordancia entre la noche interna y el horario socialmente deseado.
Melatonina circulante y sistemas tisulares locales
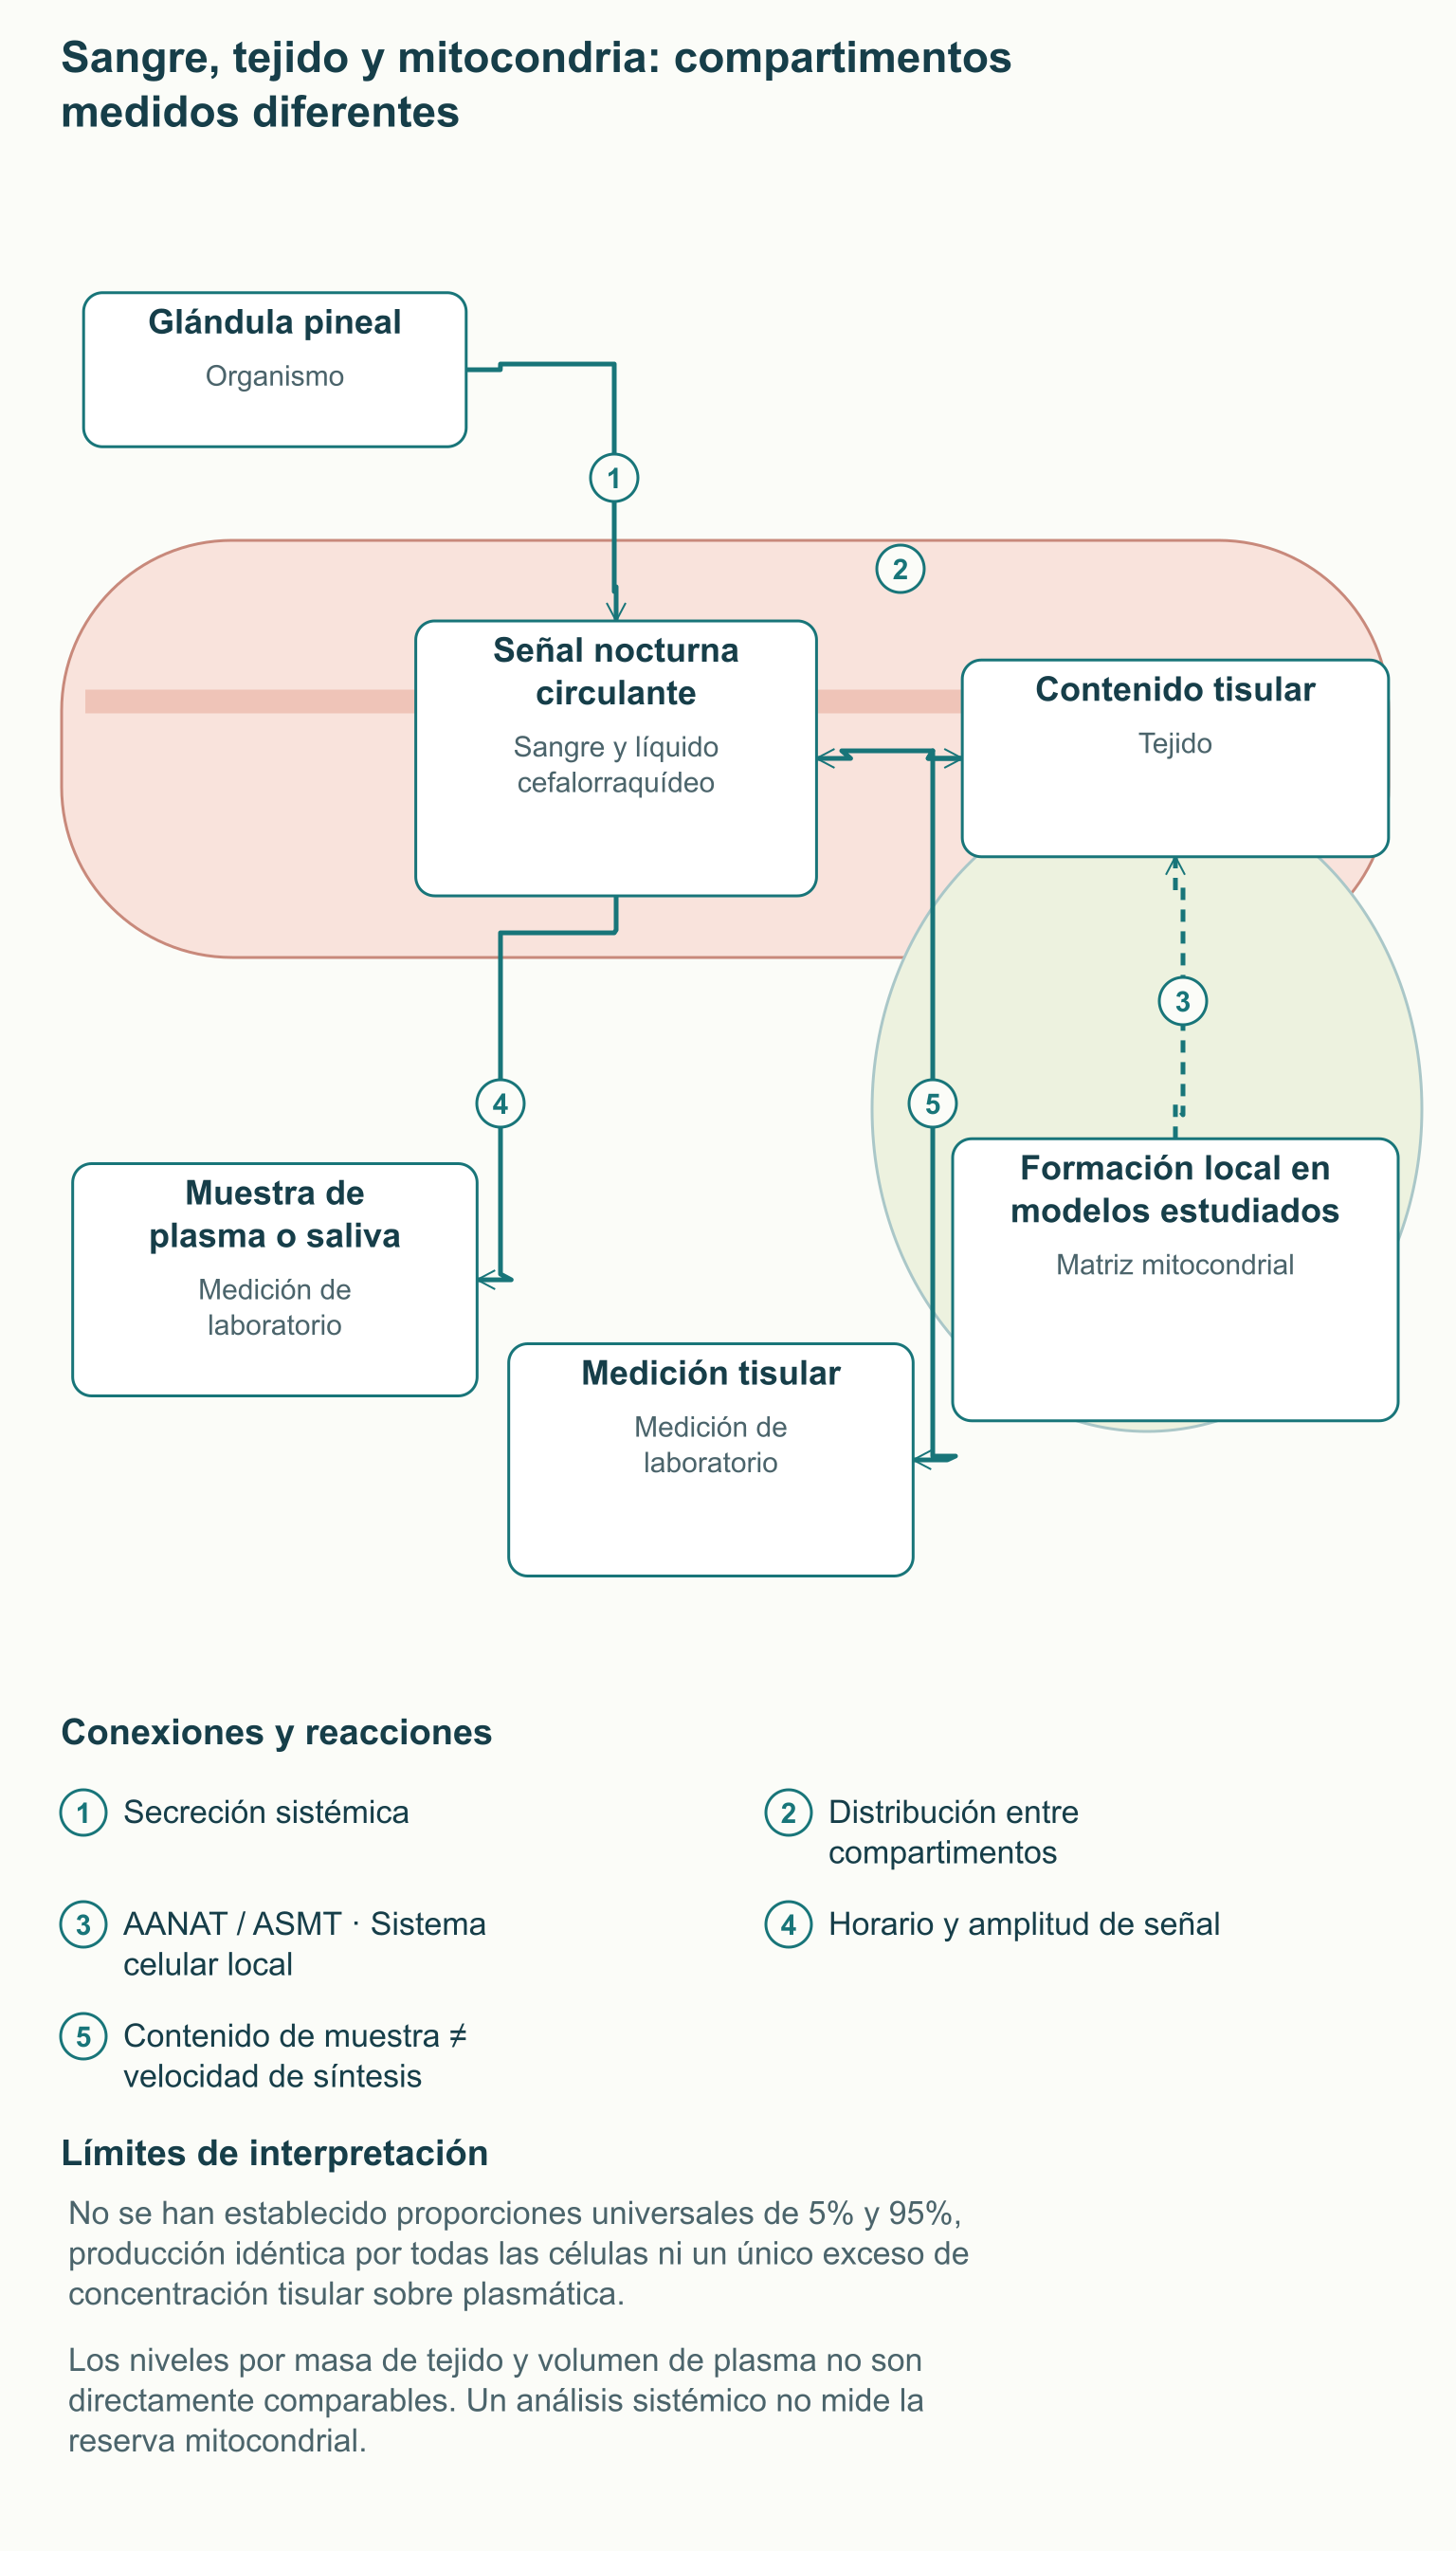
La glándula pineal es la principal fuente del marcado ritmo nocturno de melatonina circulante, pero la sustancia y las enzimas implicadas en su formación también se han detectado fuera de ella. Entre esos tejidos figuran el tubo digestivo y determinados sistemas celulares del cerebro; los resultados concretos dependen de la especie, el tejido y el método analítico. Un estudio de biopsia u homogeneizado responde a la cantidad de sustancia presente en la muestra, pero no necesariamente establece su velocidad de síntesis. Para hablar de producción local son útiles las mediciones de actividad enzimática, la transformación metabólica de un sustrato marcado y el control de pureza del orgánulo aislado.
En un estudio del sistema hepatobiliar y gastrointestinal humano se midió melatonina en biopsias de mucosa, hígado, bilis y muestras de sangre de distintos territorios vasculares. Esto confirma que el plasma es solo uno de los compartimentos medibles, aunque la determinación radioinmunológica en tejido no mide directamente la síntesis mitocondrial. Tampoco puede compararse el contenido por masa de tejido con la concentración por volumen de plasma sin supuestos adicionales. Cambian el denominador, la unión, la distribución y la posibilidad de que la sustancia circulante entre en el tejido.
La idea de dos reservas completamente independientes es útil como primera aproximación, pero demasiado rígida para la fisiología real. La melatonina circulante puede penetrar en los tejidos y la producción local no implica necesariamente un aislamiento absoluto de la sangre. No está establecido que todas las células humanas nucleadas sinteticen continuamente una reserva mitocondrial igualmente grande. Mucho menos permiten los experimentos disponibles atribuir a la pineal menos del 5% y a las mitocondrias más del 95% de la producción total del organismo humano.
La concentración nocturna de melatonina depende de la edad, la amplitud individual del ritmo, la iluminación, el momento de muestreo y el método de análisis. Incluso una medición convincente y elevada en un experimento tisular concreto no establece un exceso universal de cien o mil veces sobre la concentración plasmática. Extirpar la pineal en un modelo animal permite investigar su contribución a una medida determinada, pero no proporciona un mapa cuantitativo completo del ser humano. En la práctica clínica, la sangre o la saliva se utilizan para evaluar la señal temporal, no para contabilizar una reserva antioxidante intracelular.
Síntesis: del triptófano a la acetilación y la metilación
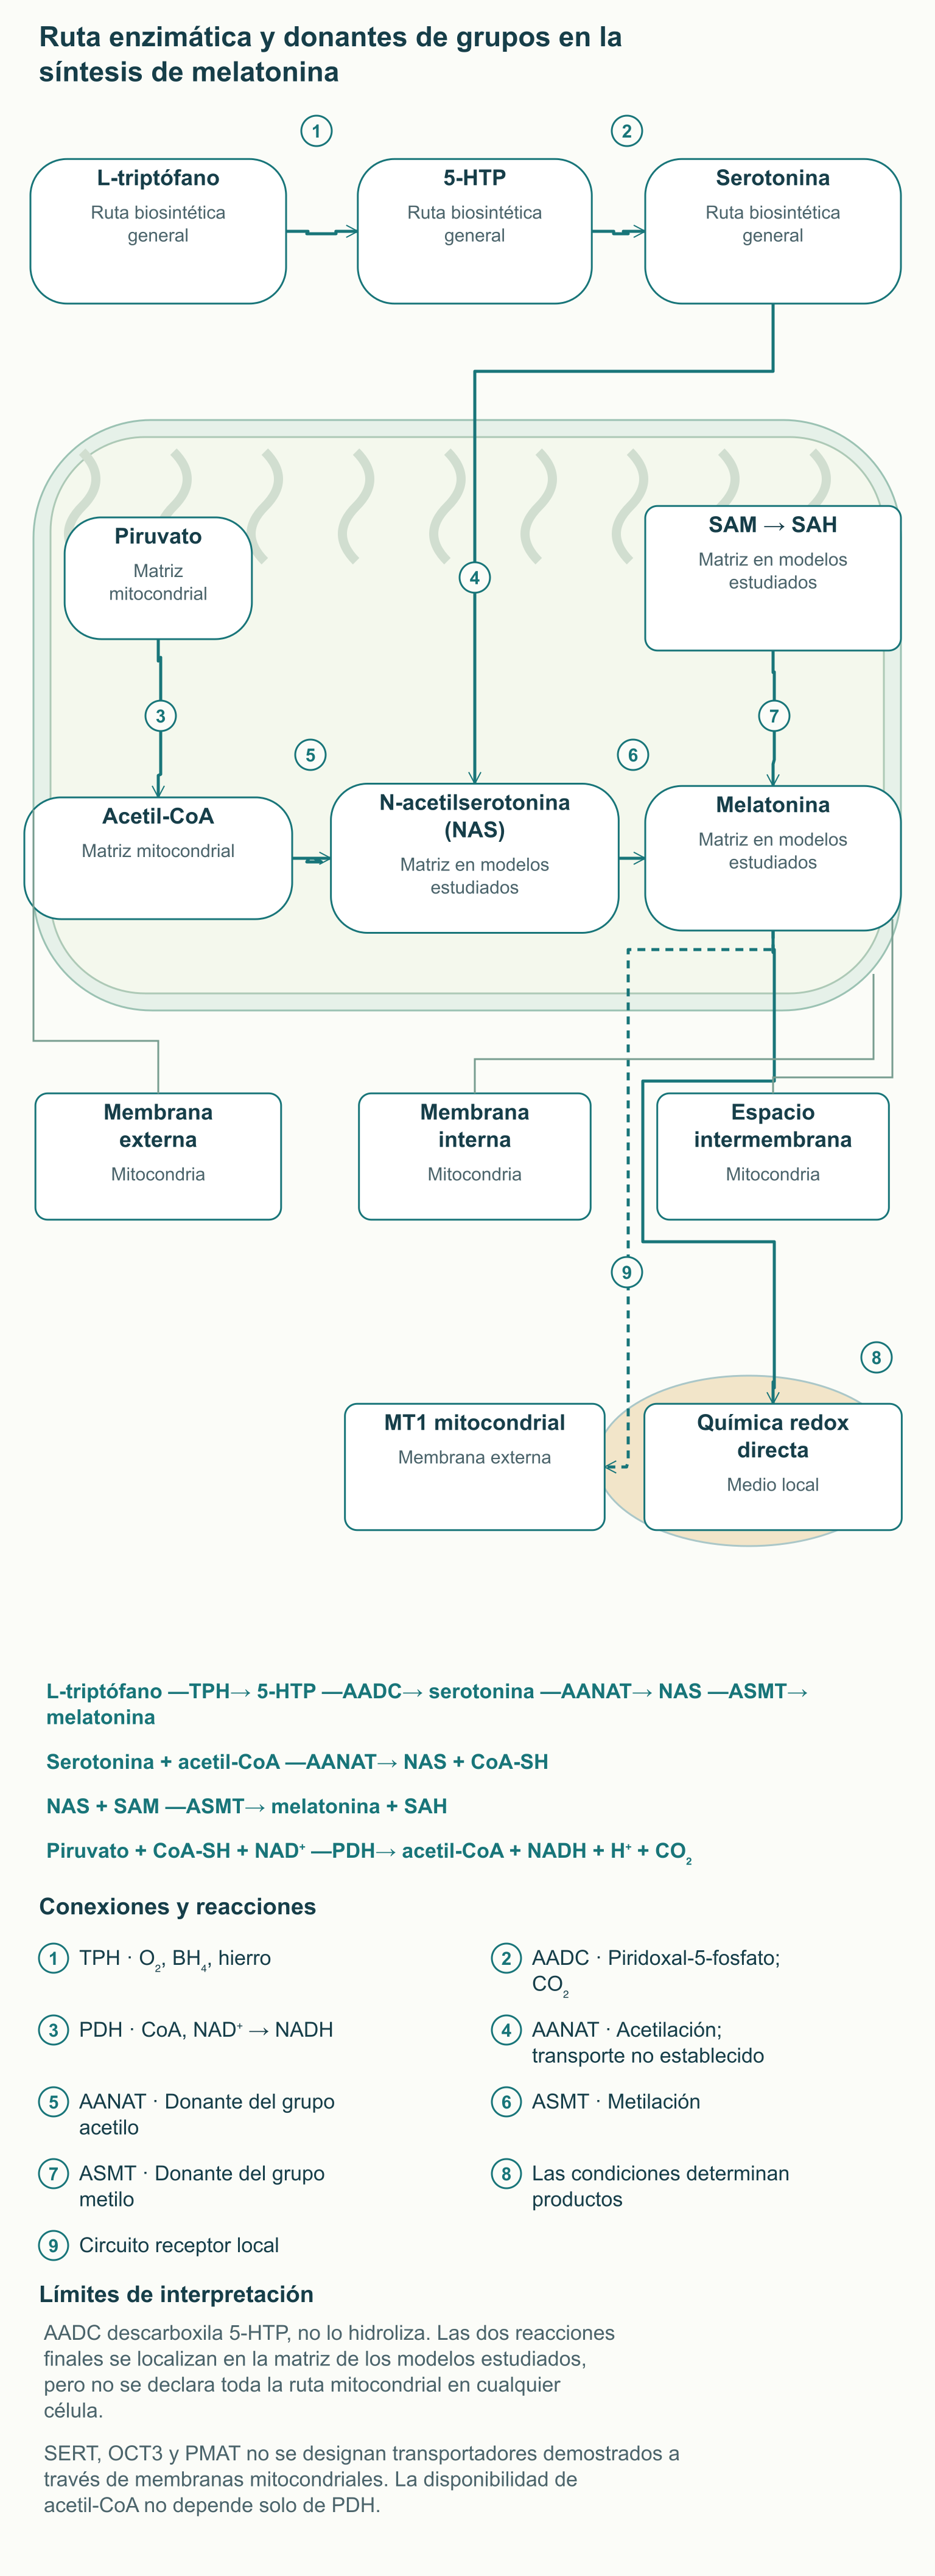
La vía clásica de producción de melatonina empieza con L-triptófano e incluye cuatro transformaciones sucesivas. La triptófano hidroxilasa, TPH, forma 5-hidroxitriptófano, o 5-HTP, con participación de oxígeno y tetrahidrobiopterina, BH₄; su sistema catalítico depende del hierro. La descarboxilasa de aminoácidos L aromáticos, AADC, elimina después el grupo carboxilo y forma serotonina y CO₂. El cofactor de AADC es el piridoxal-5-fosfato, la forma activa de la vitamina B6: se trata de una descarboxilación, no de una hidrólisis.
Las dos reacciones finales utilizan otros donantes de grupos químicos. La arilalquilamina N-acetiltransferasa, AANAT, transfiere un grupo acetilo del acetil-CoA a la serotonina y produce N-acetilserotonina, o NAS, y CoA libre. La acetilserotonina O-metiltransferasa, ASMT, también llamada HIOMT, transfiere un grupo metilo de la S-adenosilmetionina, SAM, al grupo hidroxilo de NAS. Se forman melatonina y S-adenosilhomocisteína, SAH, por lo que la acetilación y la metilación requieren tanto las enzimas como la disponibilidad de sus respectivos sustratos.
La ruta puede leerse sin notación química especializada: L-triptófano —TPH→ 5-HTP —AADC→ serotonina —AANAT→ NAS —ASMT→ melatonina. Aquí la flecha indica una reacción enzimática, no el desplazamiento de una molécula entre compartimentos celulares. En la pineal, AANAT es un eslabón regulado importante de la secreción nocturna, pero la denominación «única enzima limitante» no debe trasladarse automáticamente a cualquier tejido o situación experimental. El flujo de toda la ruta también depende de los precursores, la actividad de ASMT y la eliminación de productos.
En el trabajo de Suofu y colaboradores se detectaron AANAT y ASMT en la matriz mitocondrial en sistemas experimentales relacionados con cerebro de ratón y células neuronales. El estudio incluyó mitocondrias aisladas y células N2a, por lo que es relevante para la hipótesis de síntesis local, pero no describe todos los tejidos humanos. Encontrar las dos enzimas finales en la matriz no demuestra que las cuatro etapas ocurran siempre allí. Los precursores pueden llegar desde otros compartimentos y su transporte necesita demostrarse de manera independiente.
El transportador de serotonina SERT, OCT3 y PMAT participan en el transporte de monoaminas en sistemas celulares determinados, pero eso no los convierte en transportadores establecidos a través de ambas membranas mitocondriales. Por ello, el esquema no dibuja una ruta confirmada de entrega de serotonina a la matriz mediante estas proteínas. La diferencia entre una reacción conocida y un transporte no establecido es especialmente importante para el profesional: de lo contrario, el mapa parece completo solo porque se añadió un detalle sin fundamento. Por el mismo motivo, la participación de B6 o SAM en una reacción no demuestra que suplementarlos mejore el sueño humano cuando no existe la deficiencia correspondiente.
Acetil-CoA, PDH y metabolismo energético
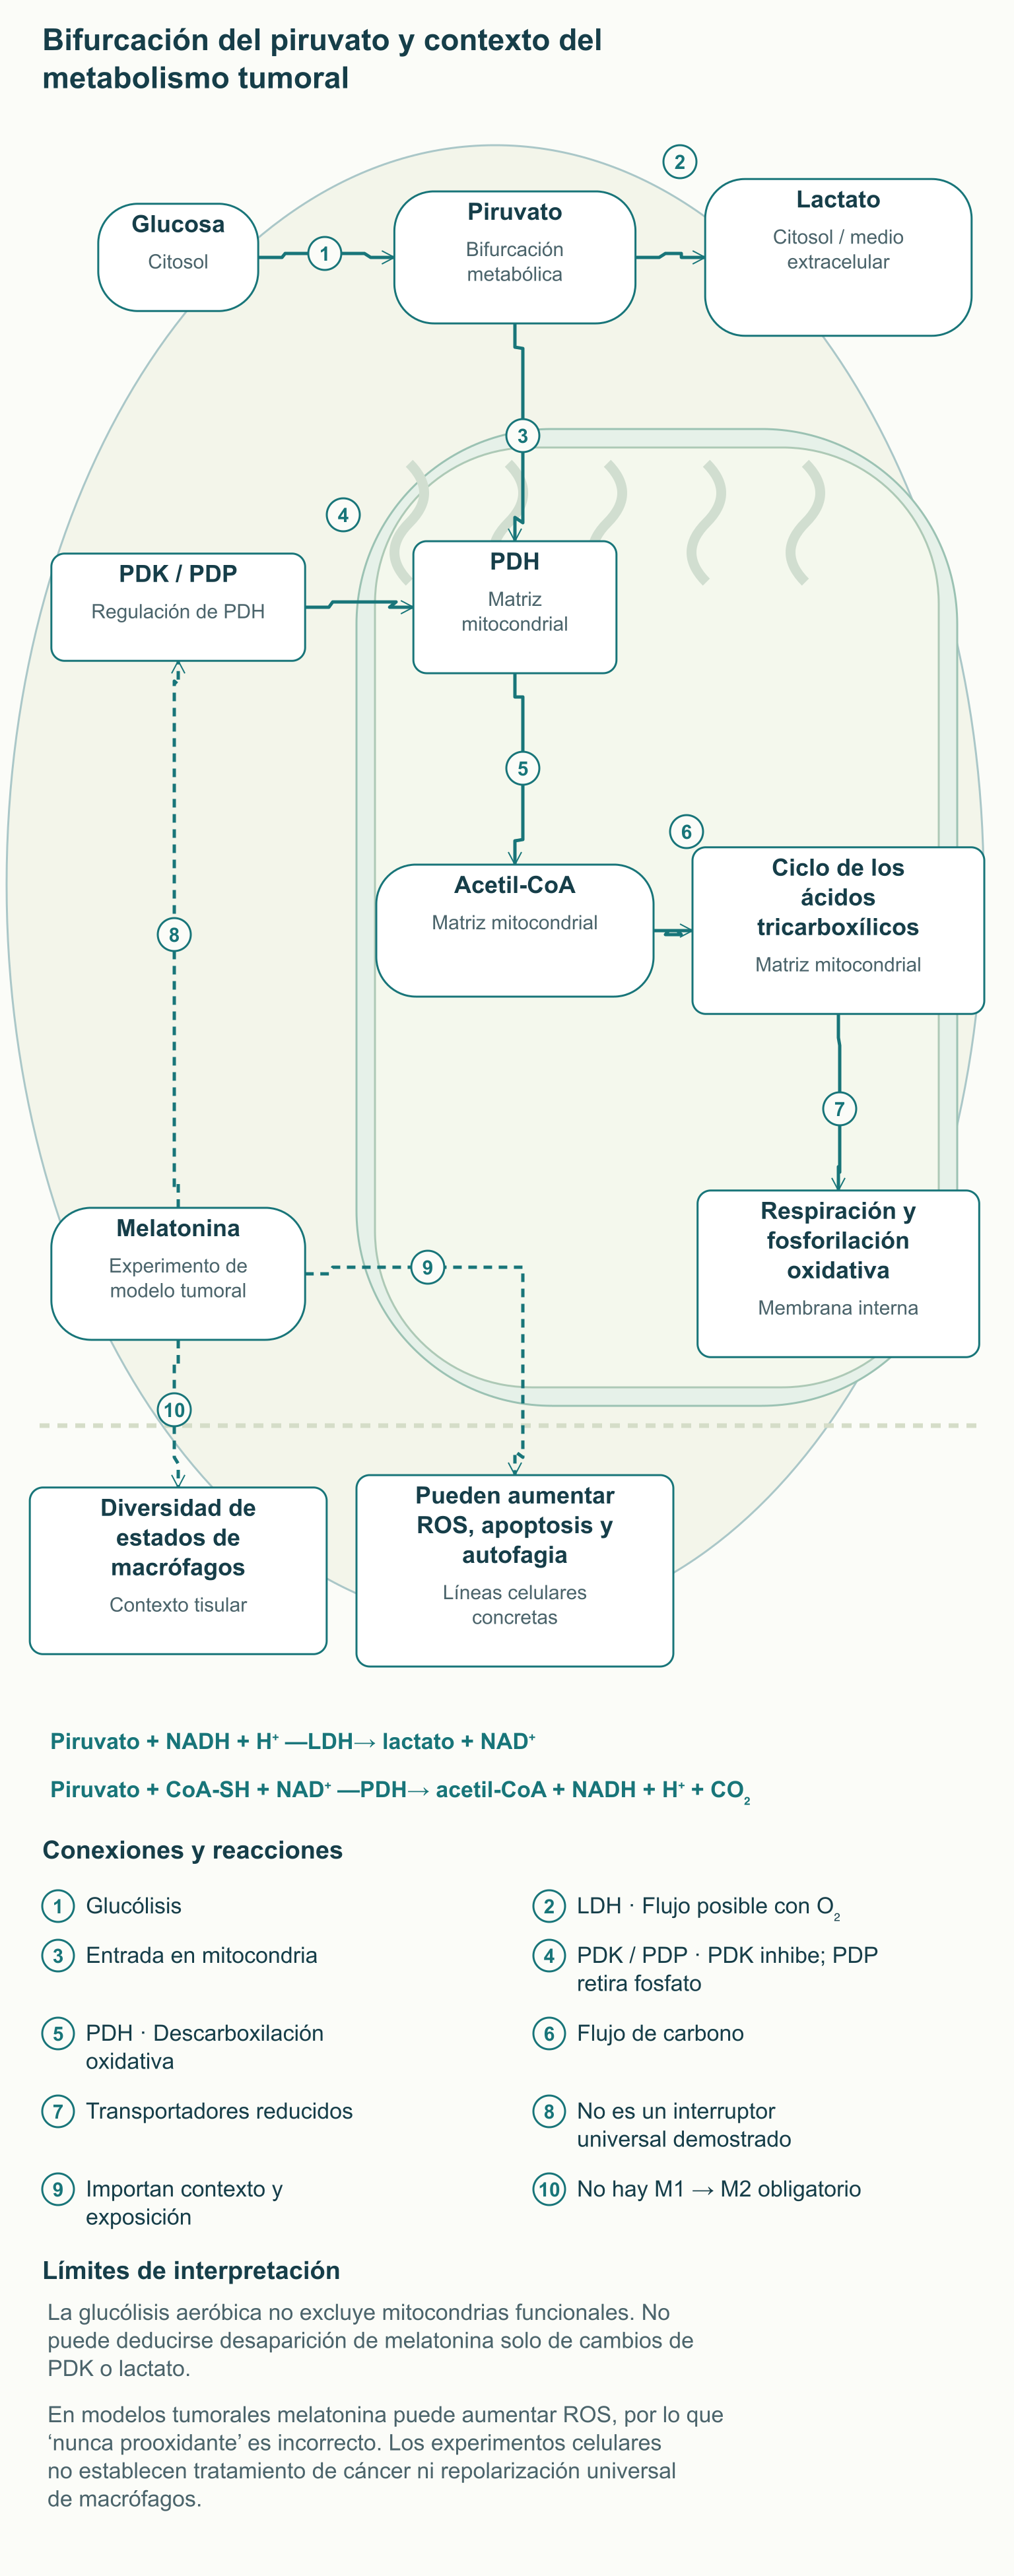
El acetil-CoA relaciona la producción de melatonina con una red más amplia del metabolismo celular. El complejo piruvato deshidrogenasa, PDH, cataliza la descarboxilación oxidativa del piruvato que entra en la mitocondria desde la glucólisis. La reacción se escribe así: piruvato + CoA-SH + NAD⁺ —PDH→ acetil-CoA + NADH + H⁺ + CO₂. El grupo acetilo puede utilizarse después en el ciclo de los ácidos tricarboxílicos o en otras reacciones, incluida la acetilación de serotonina allí donde exista el sistema enzimático correspondiente.
PDH es un complejo multicomponente, no un canal sencillo que se abra al dormir bien. Su funcionamiento depende del pirofosfato de tiamina, el grupo lipoamida, FAD, CoA y NAD⁺, además del estado energético y redox de la matriz. Las quinasas PDK fosforilan el complejo y reducen su actividad, mientras que las fosfatasas PDP eliminan ese freno. Las relaciones NADH/NAD⁺ y acetil-CoA/CoA reflejan hasta qué punto la célula necesita seguir oxidando piruvato.
La relación de sustrato entre PDH y AANAT no significa que inhibir PDH elimine necesariamente la melatonina mitocondrial. El acetil-CoA puede formarse a partir de ácidos grasos y otras fuentes, y su disponibilidad depende del tejido y del estado metabólico. Incluso la reducción de un flujo concreto no equivale a que el orgánulo contenga cero cantidad de la sustancia. Para afirmar una detención completa de la síntesis habría que medirla directamente bajo una intervención definida, en vez de deducirla únicamente de una cadena atractiva de flechas.
En la práctica, esta relación ayuda a comprender por qué la investigación de melatonina se cruza con la bioenergética, pero no justifica prescribir por cuenta propia «activadores de PDH». Tampoco permite diagnosticar una deficiencia de melatonina mitocondrial a partir del lactato sanguíneo o la fatiga. Esos indicadores tienen muchas causas y carecen de la especificidad necesaria. Al interpretar un mecanismo hay que establecer si los autores midieron actividad enzimática, flujo metabólico, concentración de producto o solo expresión del gen correspondiente.
MT1 y MT2: señalización receptora en la membrana
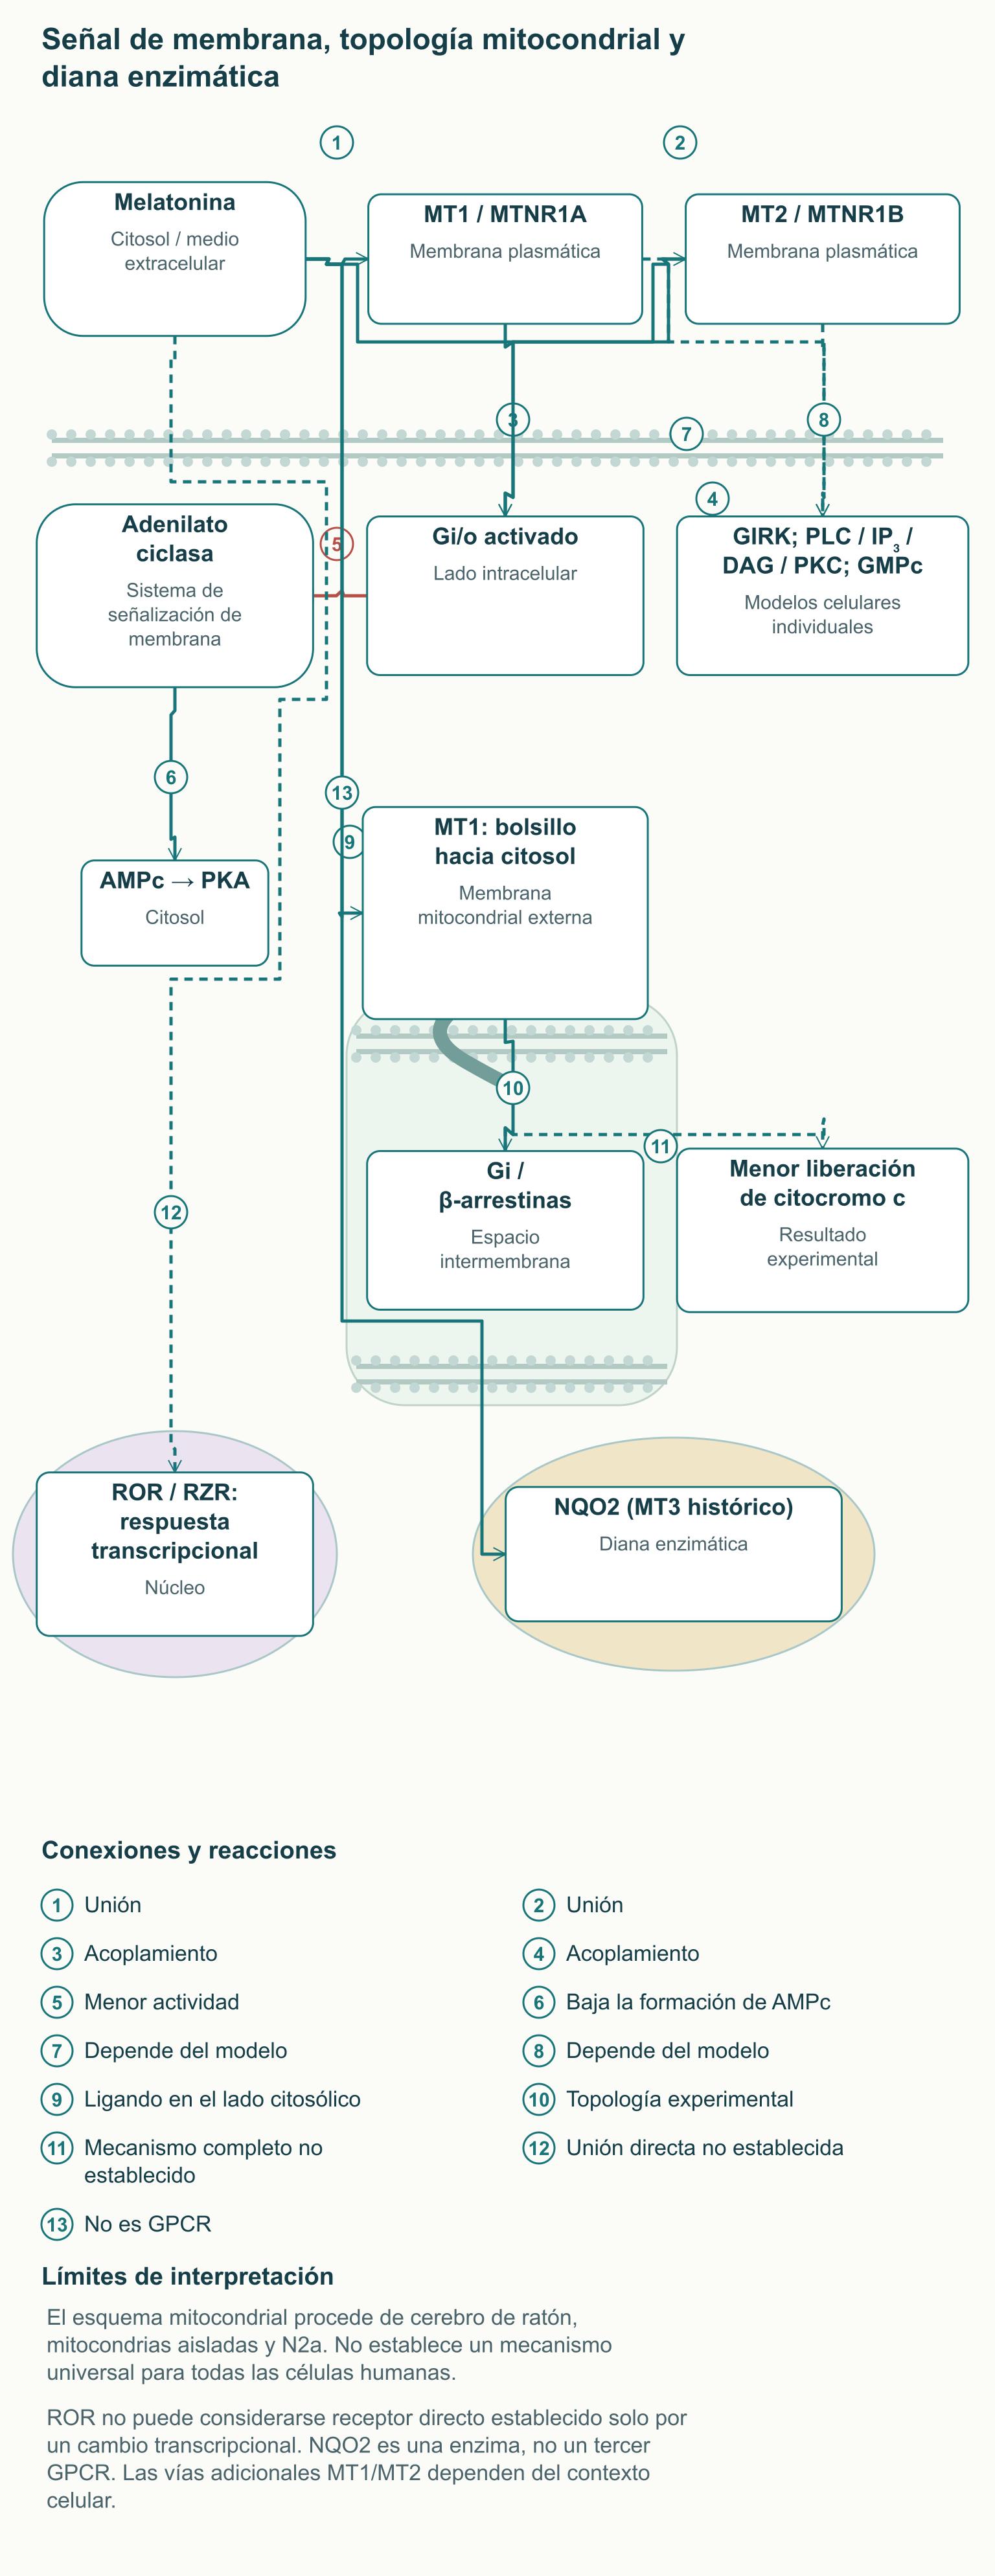
MT1 y MT2 son receptores acoplados a proteínas G codificados por MTNR1A y MTNR1B. Su estructura incluye siete hélices transmembrana y un sitio de unión del ligando; los estudios estructurales de los receptores humanos han revelado detalles del reconocimiento de agonistas. Al activarse, el receptor modifica su interacción con la proteína G, en lugar de limitarse a sujetar una molécula cerca de la membrana. El acoplamiento a Gi/o puede reducir la actividad de adenilato ciclasa y la formación de AMP cíclico, o AMPc, uno de los intermediarios de señalización intracelular.
Reducir AMPc puede disminuir la activación de proteína quinasa A, pero la respuesta final depende de la organización de cada célula. La proteína G consta de componentes α y βγ, cuyas señales pueden afectar a canales iónicos y otras vías enzimáticas. En sistemas neuronales se estudian los canales de potasio GIRK y los cambios de excitabilidad, y en modelos individuales, PLC, IP₃, DAG, PKC y GMPc. Estas observaciones no deben sumarse en un programa obligatorio que cada MT1 o MT2 ejecute de la misma forma en cualquier órgano.
Característica
MT1
MT2
Gen y región cromosómica
MTNR1A, 4q35.2
MTNR1B, 11q14.3
Clase de diana
GPCR de siete segmentos transmembrana
GPCR de siete segmentos transmembrana
Acoplamiento bien demostrado
Gi/o, disminución de AMPc en los sistemas correspondientes
Gi, disminución de AMPc en los sistemas correspondientes
Vías adicionales
Canales iónicos y quinasas; el resultado depende de la célula
PLC/PKC y otros intermediarios en modelos individuales
Contexto fisiológico
Señal nocturna y regulación neuronal
Regulación circadiana y respuestas metabólicas
Interpretación de la afinidad
Parámetro de un ligando y un método concretos
Parámetro de un ligando y un método concretos
La constante de disociación, Kd, describe la unión en condiciones experimentales concretas y no puede presentarse como una cifra invariable para todos los tejidos y medicamentos. Las estructuras obtenidas con ramelteón u otros agonistas no significan que esas sustancias tengan exactamente la misma farmacocinética y efecto clínico que la melatonina. Del mismo modo, la diferencia entre MT1 y MT2 no se reduce a «uno induce el sueño y el otro adelanta el reloj». El sistema circadiano integra distintas células y señales, y la respuesta de fase resultante depende del momento de exposición.
Los efectos vasculares tampoco pueden reducirse a una oposición universal entre vasoconstricción por MT1 y vasodilatación por MT2. La respuesta depende del territorio vascular, el estado del tejido, la concentración y otros sistemas reguladores. Esta simplificación es especialmente peligrosa si se utiliza para deducir una reducción predecible de presión arterial en un paciente concreto. En clínica se evalúan directamente la presión y cómo se siente la persona, mientras que la descripción mecanística sirve para plantear una pregunta, no para sustituir el resultado observado.
MT1 mitocondrial: orientación precisa y límites del experimento
El estudio de Suofu propuso un mecanismo de señalización local de melatonina que los autores denominaron automitocrino. En los sistemas estudiados, MT1 estaba en la membrana mitocondrial externa y su cara de unión del ligando miraba hacia el citosol. Gi y las β-arrestinas se detectaban en el lado del espacio intermembrana. Es una topología inusual y cambiar sus lados modifica el significado del esquema completo: la melatonina no debe representarse uniéndose a un bolsillo orientado hacia el interior del espacio intermembrana.
La melatonina formada localmente puede salir de la matriz e interactuar con una diana de la membrana externa, pero su recorrido no puede darse por completamente descrito solo a partir de la ubicación de las enzimas. En los experimentos, activar el sistema receptor se acompañó de menor AMPc local y menor liberación de citocromo c. Gi se activa como regulador inhibidor de adenilato ciclasa: decir «la melatonina inhibe Gi» invierte la relación causal. Los autores no establecieron de manera definitiva todo el mecanismo que limita la salida de citocromo c, por lo que las flechas hacia Bax, PKA y el poro no deben presentarse como una secuencia universal terminada.
Las limitaciones técnicas del trabajo también son relevantes para interpretarlo. Además de tejido cerebral de ratón, se utilizaron células N2a con MT1 recombinante, y la especificidad de detección del receptor endógeno suponía una dificultad metodológica. Los autores no demostraron directamente que la melatonina de origen mitocondrial proporcione esa misma neuroprotección in vivo en humanos. Por tanto, el sistema receptor local es una explicación investigadora de un posible efecto celular, no una base para calcular la producción diaria humana ni elegir una dosis oral para proteger el cerebro.
ROR/RZR y NQO2: distintos niveles de interacción
Los receptores nucleares de la familia ROR regulan la transcripción, pero no debe considerarse demostrada su unión directa a melatonina basándose en un esquema receptor antiguo. En un trabajo primario con tejido hipofisario ovino se estudiaron la presencia de RORα y la unión nuclear específica de melatonina marcada; había ARN del receptor, pero no se detectó la unión nuclear correspondiente. En células de cáncer de mama se describieron cambios de actividad de RORα bajo melatonina, aunque un efecto transcripcional puede ser indirecto. La diferencia entre modificar la actividad de un factor y unirse físicamente a él es esencial al elegir el término «receptor».
Por ello, la regulación de COX-2, iNOS, NF-κB o genes inflamatorios no se representa como una cadena universal demostrada de «melatonina — ROR — supresión de inflamación». Los cambios observados en esas vías pueden depender del modelo celular, el tiempo y la dosis, además de otras dianas de señalización. La expresión «efecto nuclear» indica dónde aparece la respuesta final, pero no necesariamente dónde se produce la unión inicial de la molécula. Esta precisión mantiene el contenido de regulación genómica y elimina un intermediario directo asignado incorrectamente.
El sitio histórico MT3 se relaciona con otra diana molecular, la enzima quinona reductasa 2, NQO2. Se identificó mediante aislamiento de proteínas, métodos moleculares y expresión de la enzima humana en células; posteriormente se estudió la interacción con métodos cinéticos y estructurales. NQO2 no es un tercer receptor de melatonina de siete segmentos transmembrana y no debe situarse junto a MT1 y MT2 como otro GPCR. La unión o inhibición de una enzima tampoco garantiza una «detoxificación de todas las quinonas»: el resultado depende del sustrato y de las condiciones de la reacción redox.
Química redox directa: velocidad de reacción y competencia celular
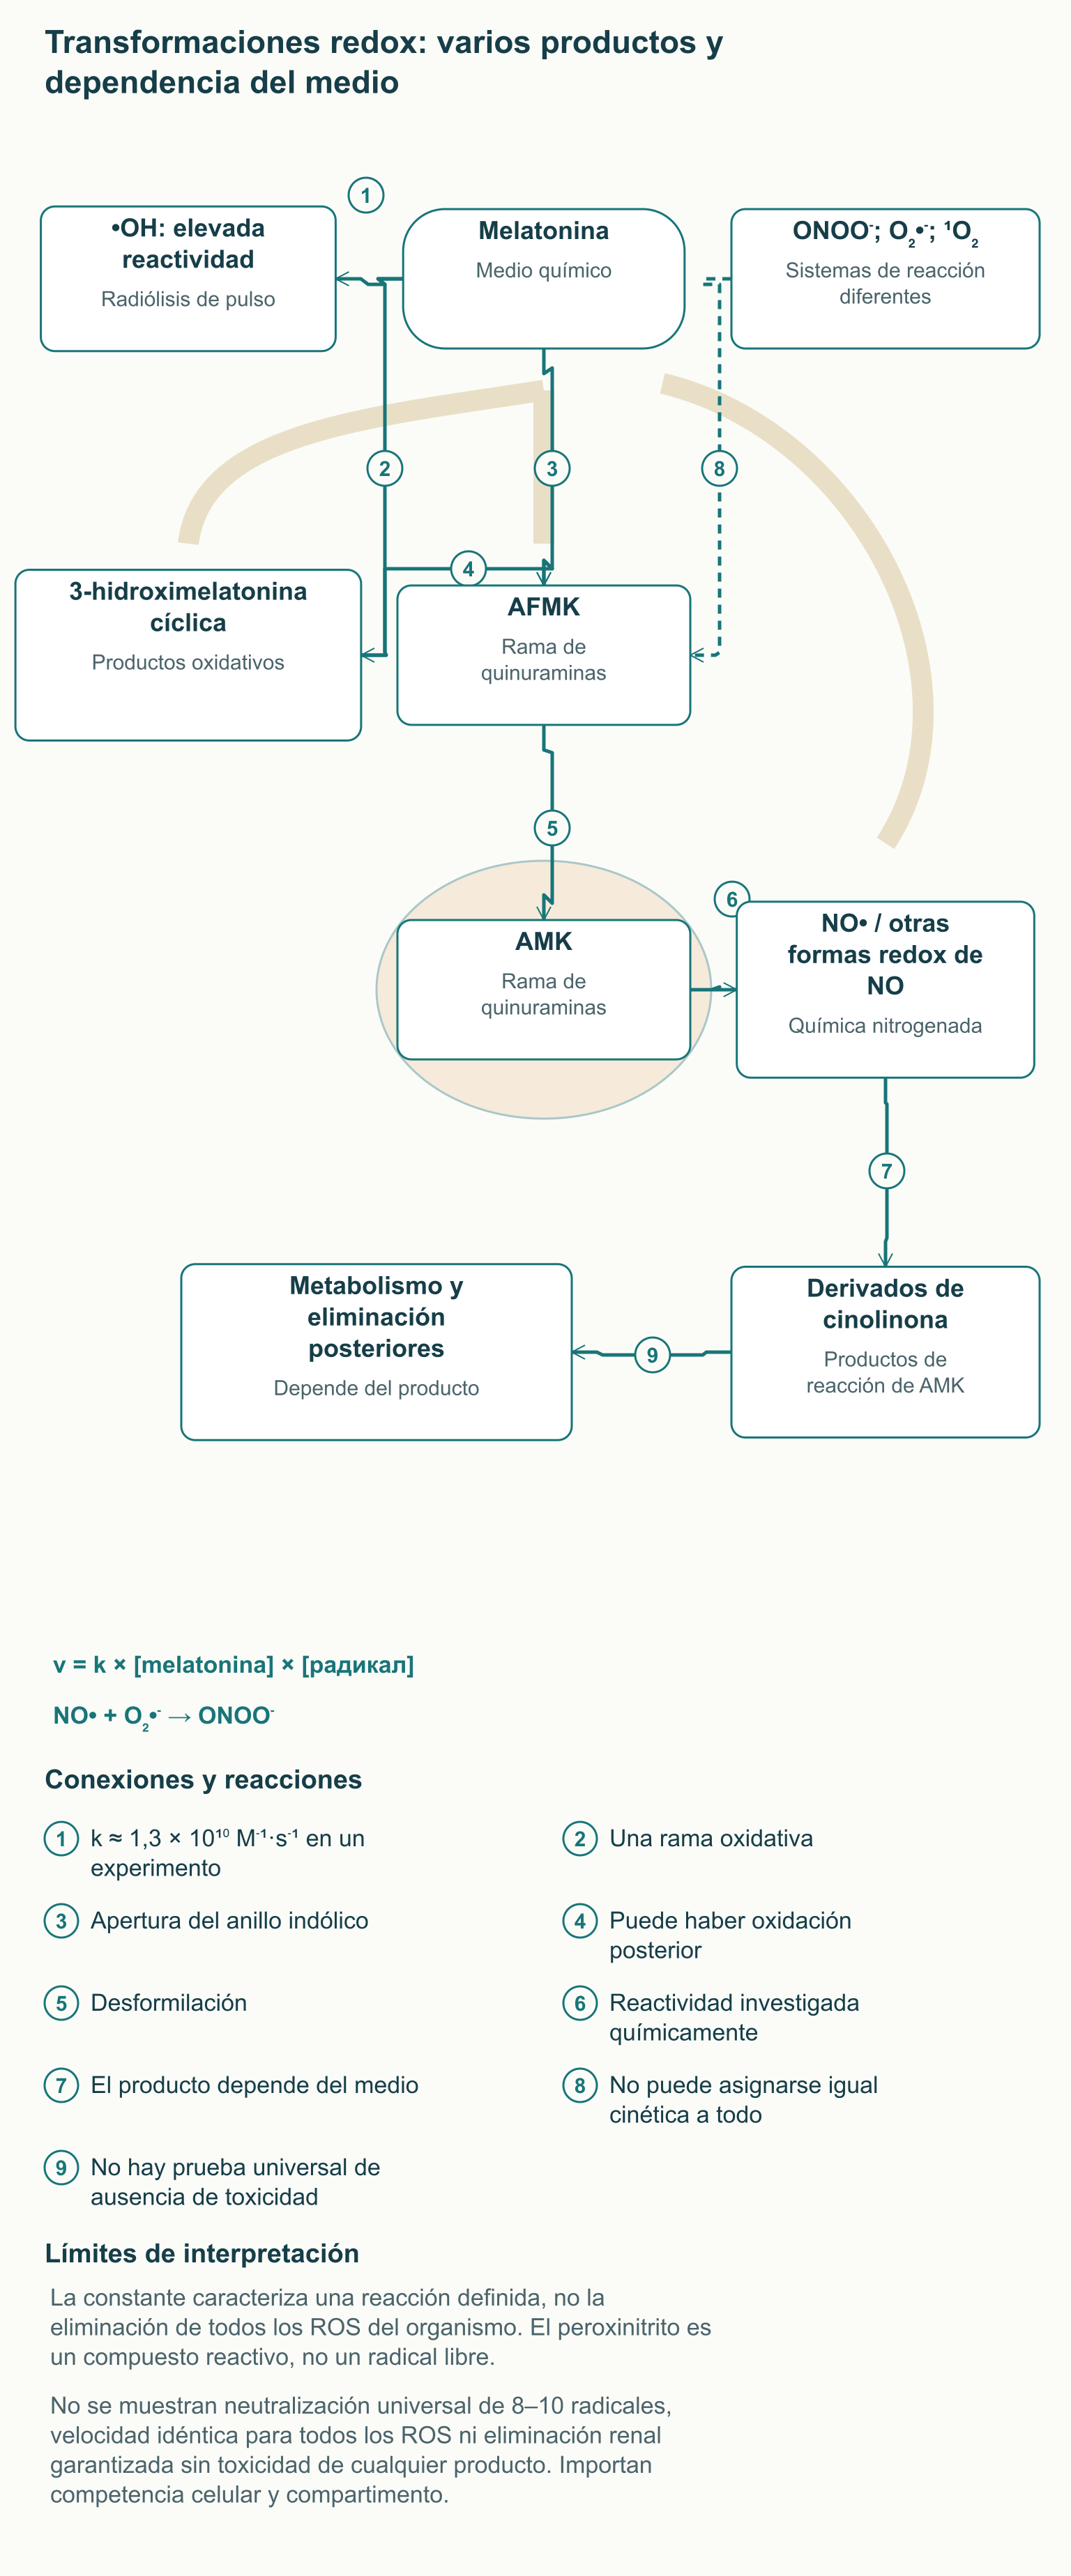
La melatonina puede reaccionar con determinadas especies reactivas de oxígeno y nitrógeno sin intervención de un receptor de membrana. En un estudio de radiólisis de pulso, la velocidad de reacción con el radical hidroxilo se caracterizó mediante una constante de aproximadamente 1,3 × 10¹⁰ M⁻¹·s⁻¹, cercana al límite de difusión. Esa magnitud muestra una elevada reactividad química en las condiciones definidas del experimento. No significa que una dosis oral pequeña neutralice cada radical hidroxilo en todos los tejidos del organismo.
La velocidad de una reacción de segundo orden depende no solo de la constante k, sino también de las concentraciones de ambos reactivos: v = k × [melatonina] × [radical]. En la célula, el radical encuentra simultáneamente proteínas, lípidos, ácidos nucleicos y otras moléculas pequeñas. Por tanto, la probabilidad de reacción depende de la competencia, la distancia al lugar de formación y la disponibilidad de la sustancia en el compartimento correspondiente. El radical hidroxilo tiene una vida extremadamente breve, y prevenir su formación suele ser más importante que entregar una «trampa» desde la sangre una vez iniciado el daño.
Otras especies reactivas no pueden equipararse automáticamente al radical hidroxilo. Los experimentos con distintas formas de generación y registro de compuestos reactivos han producido estimaciones diferentes de actividad de melatonina, incluida una reacción mucho más débil con superóxido. El peroxinitrito, ONOO⁻, no es un radical libre, aunque participa en el daño nitrosativo y en la formación de productos reactivos secundarios. Un esquema científico debe distinguir las especies químicas, en vez de agruparlas como «radicales» con una única velocidad de eliminación.
Algunas transformaciones oxidativas abren el anillo indólico de la melatonina y forman AFMK, N¹-acetil-N²-formil-5-metoxiquinuramina. La desformilación de AFMK puede producir AMK, N¹-acetil-5-metoxiquinuramina, que también participa en reacciones con compuestos nitrogenados. En experimentos químicos primarios, AMK reaccionó con distintas formas redox de NO y produjo, entre otros compuestos, un derivado de cinolinona. Es una descripción más precisa que una sola flecha hacia una «cinolina no tóxica» que supuestamente termina cualquier reacción de melatonina.
La idea de una cascada antioxidante significa que algunos productos de transformación pueden conservar actividad. Sin embargo, «una molécula neutraliza de forma garantizada ocho–diez radicales» no es una estequiometría celular o clínica universal. La ruta depende del medio, el oxidante, la participación enzimática y el destino posterior de los productos, mientras que la ausencia de toxicidad debe demostrarse por separado. Tampoco es correcto oponer melatonina a vitaminas C y E como una molécula absolutamente segura frente a antioxidantes inevitablemente prooxidantes: el efecto biológico de todas estas sustancias depende de las condiciones.
Nrf2, enzimas antioxidantes y ciclo del glutatión
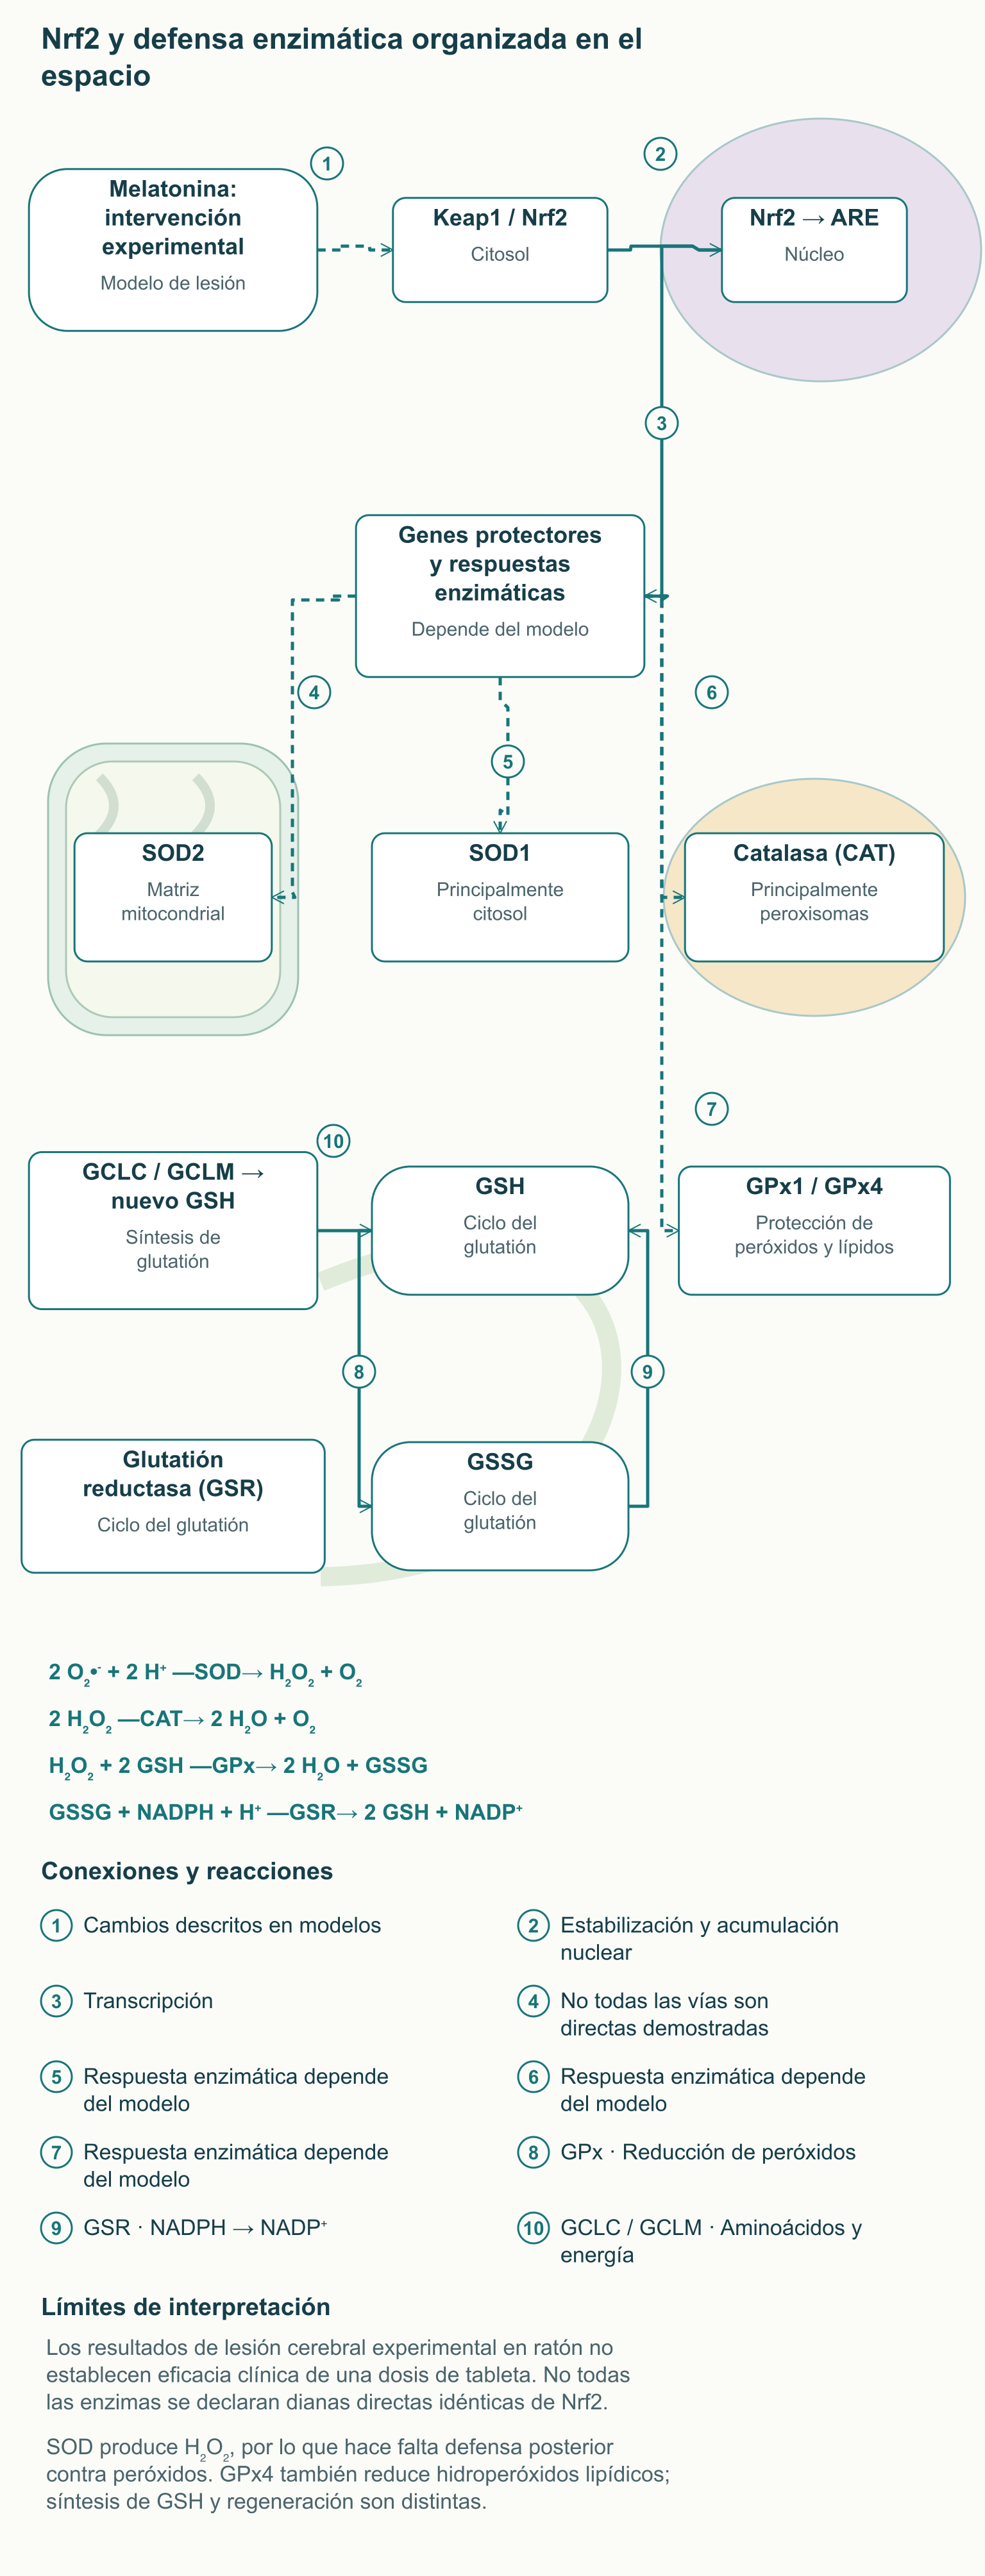
La señalización receptora y la reacción directa con compuestos reactivos no agotan los posibles efectos de la melatonina. En modelos experimentales también se investigan cambios de expresión y actividad de enzimas protectoras, incluidos los mediados por Nrf2. En condiciones basales, el sistema Keap1 ayuda a dirigir Nrf2 hacia la degradación; al cambiar las señales redox aumenta la estabilidad del factor y puede acumularse en el núcleo. Allí Nrf2, junto con otras proteínas, regula genes que contienen los elementos de respuesta ARE correspondientes.
En experimentos de Ding y colaboradores con lesión cerebral traumática en ratones se estudió Nrf2-ARE como posible mediador de la acción de melatonina. Se observaron cambios de Nrf2 nuclear, indicadores protectores y respuestas enzimáticas; utilizar animales con Nrf2 alterado ayudó a esclarecer la participación de esta vía. Se trata de una lesión experimental y una administración experimental, no de un ensayo clínico de una tableta corriente para prevenir daño cerebral. Un cambio de Nrf2 tampoco demuestra que melatonina siempre active directamente ERK, separe Keap1 y aumente por igual cada enzima antioxidante.
La defensa enzimática tiene una organización espacial. SOD2 actúa principalmente en la matriz mitocondrial, mientras que SOD1 se localiza sobre todo en el citosol y también en algunos otros compartimentos; la catalasa se asocia predominantemente a los peroxisomas. La superóxido dismutasa transforma superóxido en H₂O₂: 2 O₂•⁻ + 2 H⁺ → H₂O₂ + O₂. Así se elimina un compuesto reactivo y se forma otro, por lo que el sistema necesita controlar después el peróxido de hidrógeno.
La catalasa cataliza 2 H₂O₂ → 2 H₂O + O₂, mientras que las glutatión peroxidasas utilizan glutatión reducido, GSH. Para el peróxido de hidrógeno, la reacción puede escribirse H₂O₂ + 2 GSH → 2 H₂O + GSSG, donde GSSG es el disulfuro de glutatión oxidado. La glutatión reductasa lo regenera con NADPH: GSSG + NADPH + H⁺ → 2 GSH + NADP⁺. GPx4 es especialmente importante para reducir hidroperóxidos lipídicos, de modo que su función no puede limitarse a la misma imagen de H₂O₂ libre.
El GSH nuevo se forma en dos etapas enzimáticas, la primera con participación de glutamato-cisteína ligasa y sus subunidades GCLC catalítica y GCLM reguladora. La disponibilidad de aminoácidos, la energía y el potencial reductor determinan el funcionamiento del ciclo junto con la expresión de proteínas. El esquema separa la arquitectura establecida de la defensa de los cambios experimentales producidos por melatonina. Esto permite entender una posible mejora de la protección sin presentar todos los genes enumerados como dianas directas de Nrf2 demostradas por igual en cualquier tejido.
mPTP, membrana externa y dos vías distintas de muerte celular
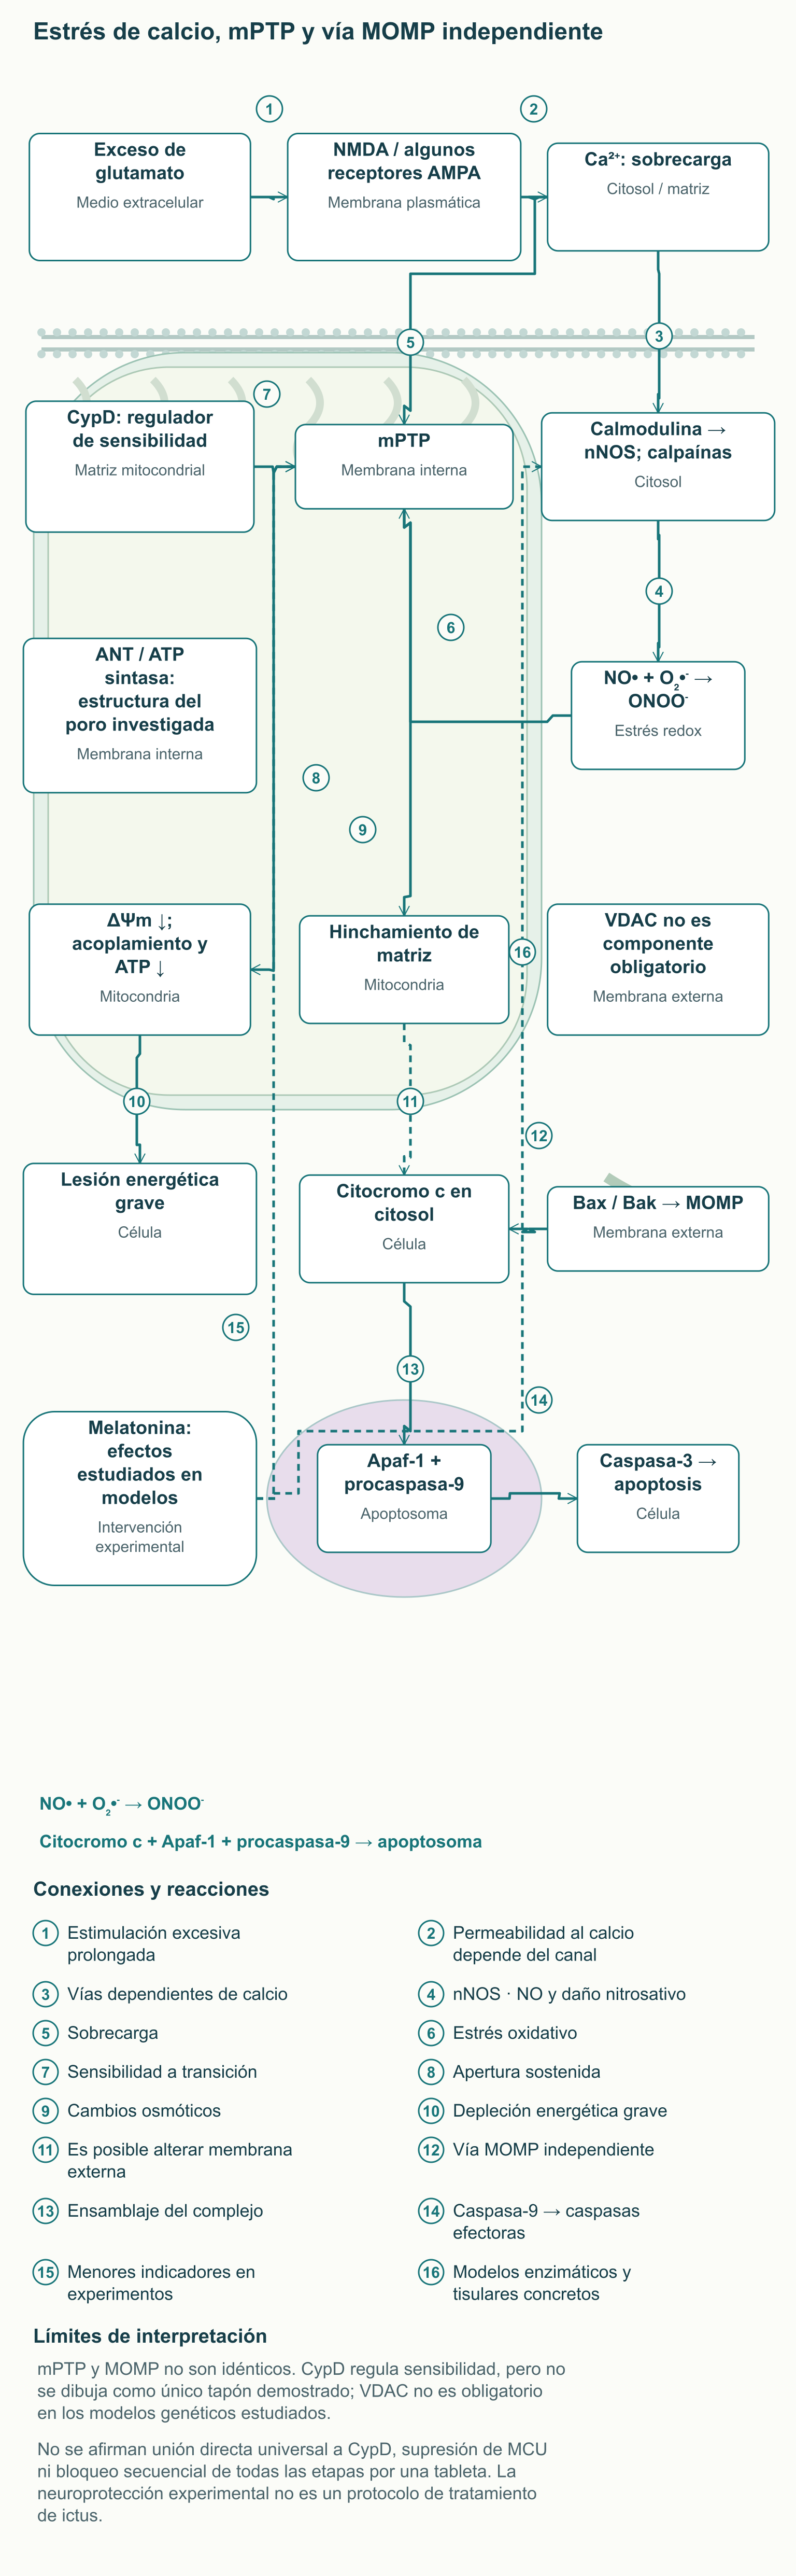
La transición de permeabilidad mitocondrial supone un aumento de permeabilidad de la membrana interna a solutos pequeños. Cuando mPTP permanece abierto, se debilita el potencial de membrana, ΔΨm, se altera el acoplamiento de la respiración con la síntesis de ATP y el agua puede provocar hinchamiento de la matriz. La transición se facilita por sobrecarga de calcio y estrés oxidativo, pero no constituye una única reacción lineal para cualquier lesión. Las consecuencias dependen de la duración, el estado energético celular y la capacidad de recuperar el gradiente de membrana. Si se pierde el gradiente, en determinadas condiciones la ATP sintasa puede funcionar en sentido inverso y consumir ATP para transportar protones en vez de producirlo.
La ciclofilina D, o CypD, es un regulador matricial de la sensibilidad a la transición de permeabilidad. Los experimentos en ratones sin el gen Ppif mostraron resistencia mitocondrial a determinadas agresiones de calcio y oxidación, y protección en algunos modelos de isquemia-reperfusión. Sin embargo, esos cambios no impedían todas las variantes de muerte apoptótica. En particular, los resultados subrayaban la diferencia entre la transición dependiente de CypD y ciertas vías reguladas por proteínas de la familia Bcl-2.
No puede presentarse mPTP como un complejo definitivamente establecido de ANT, VDAC, CypD y ATP sintasa. Las funciones de ANT y ATP sintasa se estudian en distintos modelos, mientras que VDAC está en la membrana externa; experimentos genéticos primarios mostraron que VDAC no era imprescindible para las variantes estudiadas de transición de permeabilidad y muerte celular. CypD es importante para la regulación, pero eso no equivale a reconocerlo como el único tapón estructural del poro. El esquema actual muestra los componentes investigados y su localización, conservando la incertidumbre sobre su arquitectura molecular.
Un proceso diferente es MOMP, la permeabilización de la membrana mitocondrial externa, que pueden iniciar Bax y Bak. La salida de citocromo c al citosol favorece el ensamblaje del apoptosoma con Apaf-1 y procaspasa-9, seguido de la activación de caspasas efectoras, incluida caspasa-3. El hinchamiento tras una apertura sostenida de mPTP también puede dañar la membrana externa, pero estas vías no deben considerarse idénticas. Con una deficiencia intensa de ATP, la muerte celular puede desarrollarse con predominio de lesión necrótica, sin completar necesariamente la cascada de caspasas.
En los experimentos de Andrabi y colaboradores, melatonina reducía indicadores de transición de permeabilidad, lo que apoyó la hipótesis de su participación en protección mitocondrial. Pero ese resultado no demuestra un bloqueo físico directo de CypD ni una supresión universal del uniportador mitocondrial de calcio, MCU. Observar menos liberación de citocromo c en otro sistema tampoco revela automáticamente todas las interacciones proteicas intermedias. Para trasladarlo a la clínica hacen falta estudios que relacionen una exposición determinada con conservación de la función del órgano, no solo con un marcador aislado de lesión.
Excitotoxicidad: de la sinapsis a la mitocondria
El glutamato es necesario para la transmisión normal de señales, el aprendizaje y la plasticidad, pero la activación excesiva y prolongada de sus receptores puede lesionar la neurona. Al alterarse la energía empeora la recaptación del neurotransmisor y se acumula glutamato extracelular. Los receptores NMDA pueden conducir Ca²⁺, mientras que la participación de AMPA depende, entre otras cosas, de su composición de subunidades: no todos los canales AMPA son igualmente permeables al calcio. Por ello, el esquema no representa todos los receptores de glutamato como orificios idénticos para un flujo ilimitado de calcio.
El aumento de Ca²⁺ citosólico modifica la actividad de calmodulina, las proteasas calpaínas y la sintasa neuronal de óxido nítrico, nNOS. El NO generado puede reaccionar con superóxido: NO• + O₂•⁻ → ONOO⁻. La sobrecarga de calcio mitocondrial y el daño redox de membranas agravan después el fallo energético, creando una retroalimentación positiva. En esta situación, el daño de proteínas y lípidos se combina con la alteración de gradientes iónicos y la activación de señales de muerte celular.
Se han estudiado melatonina y algunos de sus metabolitos como modificadores de eslabones concretos de este proceso. Por ejemplo, experimentos enzimáticos y un modelo con tejidos cerebrales investigaron la influencia de AMK y melatonina sobre nNOS, mientras que AFMK no mostraba el mismo efecto en ese sistema. Otros modelos evaluaron el manejo del calcio, el daño oxidativo, Bax/Bcl-2 y las caspasas. En conjunto, estos trabajos explican el interés por la neuroprotección, pero no confirman el bloqueo secuencial obligatorio de NMDA, calmodulina, nNOS, apoptosoma y caspasa-3 con cualquier dosis oral.
La interpretación profesional debe considerar el momento de intervención y la disponibilidad de la sustancia en el tejido. En la isquemia algunos procesos se desarrollan rápidamente y una concentración elevada añadida directamente al medio celular no equivale a la exposición tras una tableta. Además, reducir un marcador de laboratorio no significa necesariamente reducir discapacidad o mejorar supervivencia. Por eso la melatonina no se presenta aquí como tratamiento de urgencia del ictus, y los signos de ictus requieren atención médica estándar inmediata.
Efecto Warburg y contexto de la respuesta metabólica
El efecto Warburg significa mayor producción de lactato a partir de glucosa con oxígeno disponible, no ausencia completa de respiración mitocondrial. Una célula tumoral puede utilizar simultáneamente glucólisis, ciclo de los ácidos tricarboxílicos y fosforilación oxidativa, y dirigir además carbono a la síntesis de componentes celulares. El piruvato ocupa un punto de bifurcación: la lactato deshidrogenasa lo convierte en lactato y PDH aporta un grupo acetilo al metabolismo mitocondrial. Modificar PDK puede influir en esa distribución, pero no explica por sí solo toda la bioenergética tumoral.
En estudios primarios de modelos tumorales se ha investigado la relación entre PDK, respuesta hipóxica y producción de lactato independientemente de melatonina. Los trabajos con melatonina en líneas celulares también muestran que el efecto puede diferir entre un sistema sano y uno tumoral. En células de carcinoma escamoso de cabeza y cuello se investigó el aumento del efecto de cisplatino y radiación, acompañado de más ROS mitocondriales, apoptosis y autofagia. Este resultado muestra con especial claridad por qué no puede atribuirse a melatonina una ausencia absoluta de acción prooxidante.
La hipótesis de restaurar la síntesis local de melatonina mediante cambios de PDK/PDH sigue siendo una pregunta investigadora independiente. Para confirmar toda la cadena habría que medir fosforilación de PDH, flujo de carbono, disponibilidad de acetil-CoA y formación de melatonina en el mismo modelo. La reducción observada de lactato o un cambio en expresión de PDK no sustituyen esas mediciones. Mucho menos puede deducirse que melatonina «revierte el efecto Warburg» universalmente y trata tumores malignos.
El metabolismo de los macrófagos también cambia durante la inflamación, pero dividirlos en M1 y M2 es un lenguaje simplificado de estados experimentales. En el tejido existen programas diversos que cambian con el tiempo y dependen del entorno y la lesión. En cultivos de macrófagos se han descrito efectos de melatonina y sus metabolitos sobre respuestas inflamatorias concretas, incluida COX-2, pero eso no significa la transformación garantizada de cualquier macrófago proinflamatorio en uno reparador. La prescripción clínica debe apoyarse en un resultado medido en el paciente, no en un interruptor idealizado del fenotipo celular.
Farmacocinética: por qué no deben mezclarse IR y PR
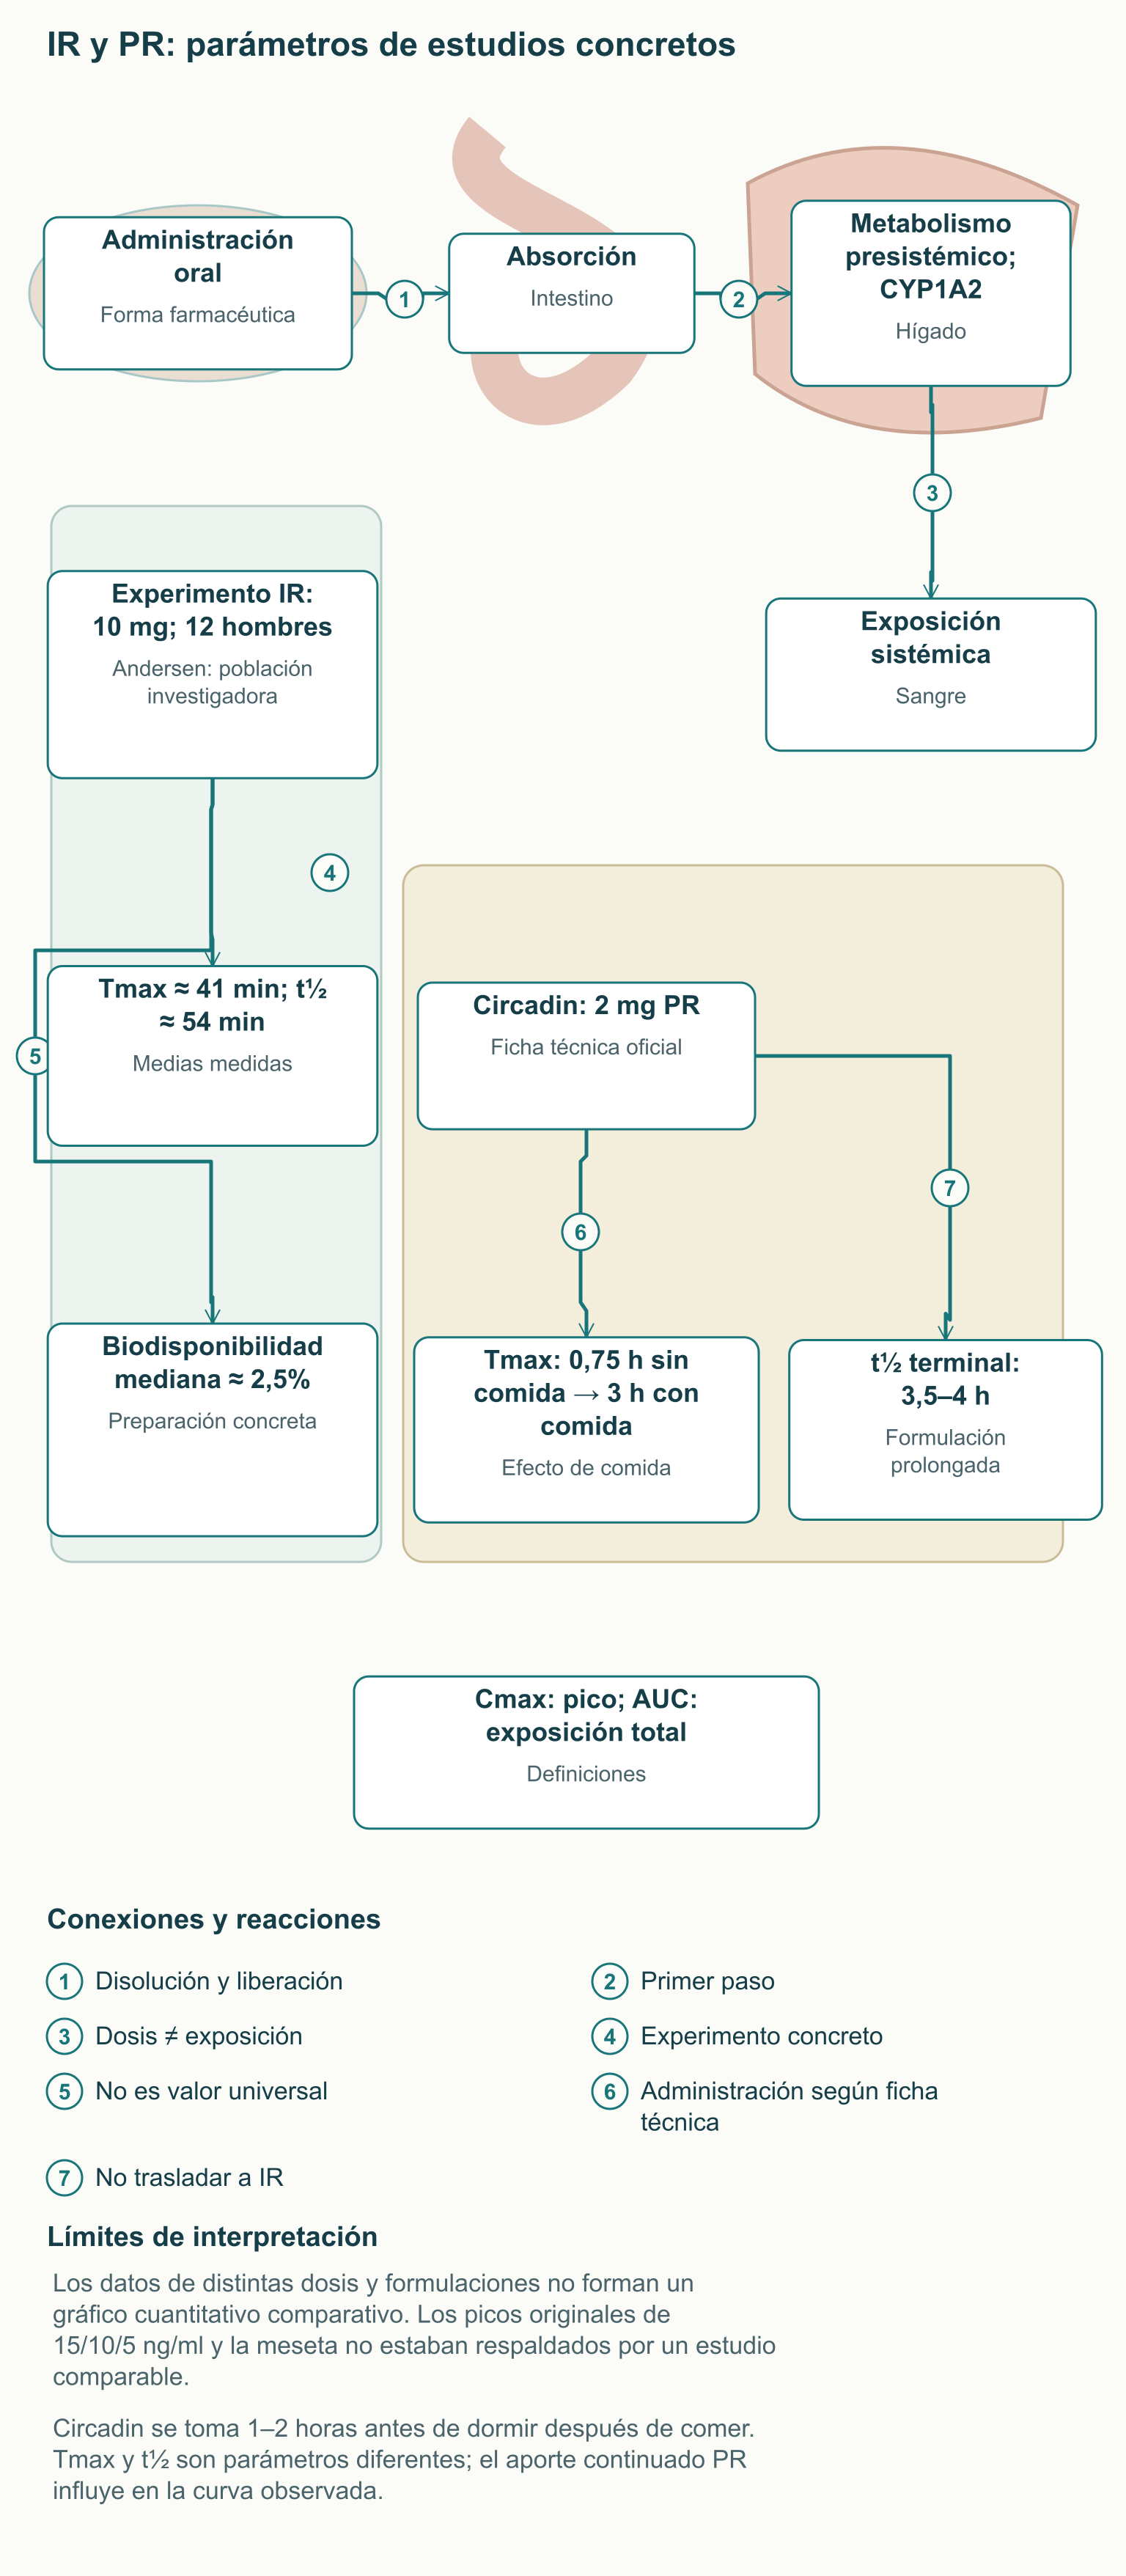
La cantidad de melatonina en una tableta no equivale a la que alcanza la circulación sistémica. Después de tomarla por vía oral se absorbe y pasa por un metabolismo presistémico considerable; la exposición depende de la formulación, la comida, el metabolismo individual y los medicamentos concomitantes. CYP1A2 es importante en su metabolismo; la 6-hidroximelatonina resultante se conjuga después, incluida la formación de 6-sulfatoximelatonina, aMT6s. Este metabolito urinario refleja una parte determinada del metabolismo sistémico, no directamente el contenido de melatonina en la matriz mitocondrial.
La formulación de liberación inmediata, IR, está diseñada para aportar la sustancia más deprisa, mientras que PR ralentiza su liberación desde la forma farmacéutica. Tmax indica el tiempo hasta la concentración máxima, Cmax el máximo y AUC la exposición total en el período observado. La semivida caracteriza el descenso de concentración en determinadas condiciones y no equivale a la duración del efecto clínico deseado. En PR, la absorción continuada también afecta a la curva observada, de modo que una «cola larga» no puede explicarse solo por un metabolismo hepático lento.
En un pequeño estudio de Andersen y colaboradores, 12 hombres sanos recibieron 10 mg de melatonina por vía oral e intravenosa en días distintos. Con la preparación oral utilizada, Tmax medio fue de unos 41 minutos y la semivida media de unos 54; la biodisponibilidad absoluta mediana fue aproximadamente del 2,5%. Es un experimento farmacocinético concreto con una dosis alta para cronobiología, no la exposición estándar de cualquier suplemento. También demuestra por qué no puede dibujarse con seguridad el mismo pico plasmático para todas las personas después de la misma tableta.
La ficha técnica de Circadin 2 mg PR describe otro perfil: la comida modifica Tmax de aproximadamente 0,75 a 3 horas y la semivida terminal es de unas 3,5–4 horas. Estos datos corresponden a una formulación de liberación prolongada concreta y a sus condiciones de administración. No pueden combinarse con el experimento de 10 mg IR en una sola curva cuantitativa de «15 ng/ml frente a 5 ng/ml» sin un estudio comparable. Por ello, la infografía presenta parámetros medidos y factores que influyen, en lugar de un gráfico inventado de concentraciones con alturas precisas pero no justificadas.
Melatonina, MTNR1B y carga de glucosa por la tarde-noche
La señal temporal de la noche se cruza con la regulación del metabolismo. MTNR1B codifica MT2, y la señalización de melatonina en células pancreáticas puede influir en la secreción de insulina mediante intermediarios intracelulares. Las variantes de este gen se asocian con diferencias de indicadores del metabolismo de carbohidratos, pero una asociación genética no demuestra que melatonina siempre cause diabetes. La respuesta breve a una carga, el riesgo de enfermedad a largo plazo y el efecto de administración farmacológica son preguntas de investigación diferentes.
Garaulet y colaboradores realizaron un ensayo aleatorizado cruzado con 845 participantes de una población española con alimentación habitualmente tardía. Cada uno pasó dos pruebas vespertinas con 75 g de glucosa después de ocho horas de ayuno: cuatro horas y una hora antes de acostarse habitualmente. Es una carga oral estandarizada de glucosa, no una comparación de dos cenas completas con proteínas, grasa y fibra. La prueba tardía coincidía con melatonina endógena unas 3,5 veces más alta; AUC de insulina era un 6,7% menor y AUC de glucosa un 8,3% mayor.
El efecto desfavorable de la carga tardía sobre tolerancia a glucosa fue más intenso en portadores del alelo G de la variante MTNR1B. Esto respalda una hipótesis causal coherente sobre la coincidencia de una señal nocturna elevada y una carga de carbohidratos, pero no establece un intervalo universal seguro de 2,5–3 horas para cualquier alimento y formulación. En el propio experimento no se administraba una tableta de melatonina ni se medía la aparición de diabetes después de un tratamiento prolongado. Por eso el resultado no debe convertirse en una prohibición de todas las comidas tardías ni en una exigencia de pruebas genéticas para cada usuario.
En la práctica conviene que el profesional comente el horario habitual de sueño y comida, la presencia de diabetes o prediabetes y el objetivo real de utilizar melatonina. Si ya existe una prescripción, el horario alimentario y la vigilancia glucémica se eligen dentro del contexto de la enfermedad y de la formulación concreta. La instrucción de tomar Circadin después de comer no puede anularse mecánicamente por un experimento de melatonina endógena y OGTT. Cuando se necesitan cambios de tratamiento u horario, deben coordinarse como una estrategia única y no acumular consejos generales contradictorios.
Interacciones farmacológicas y seguridad
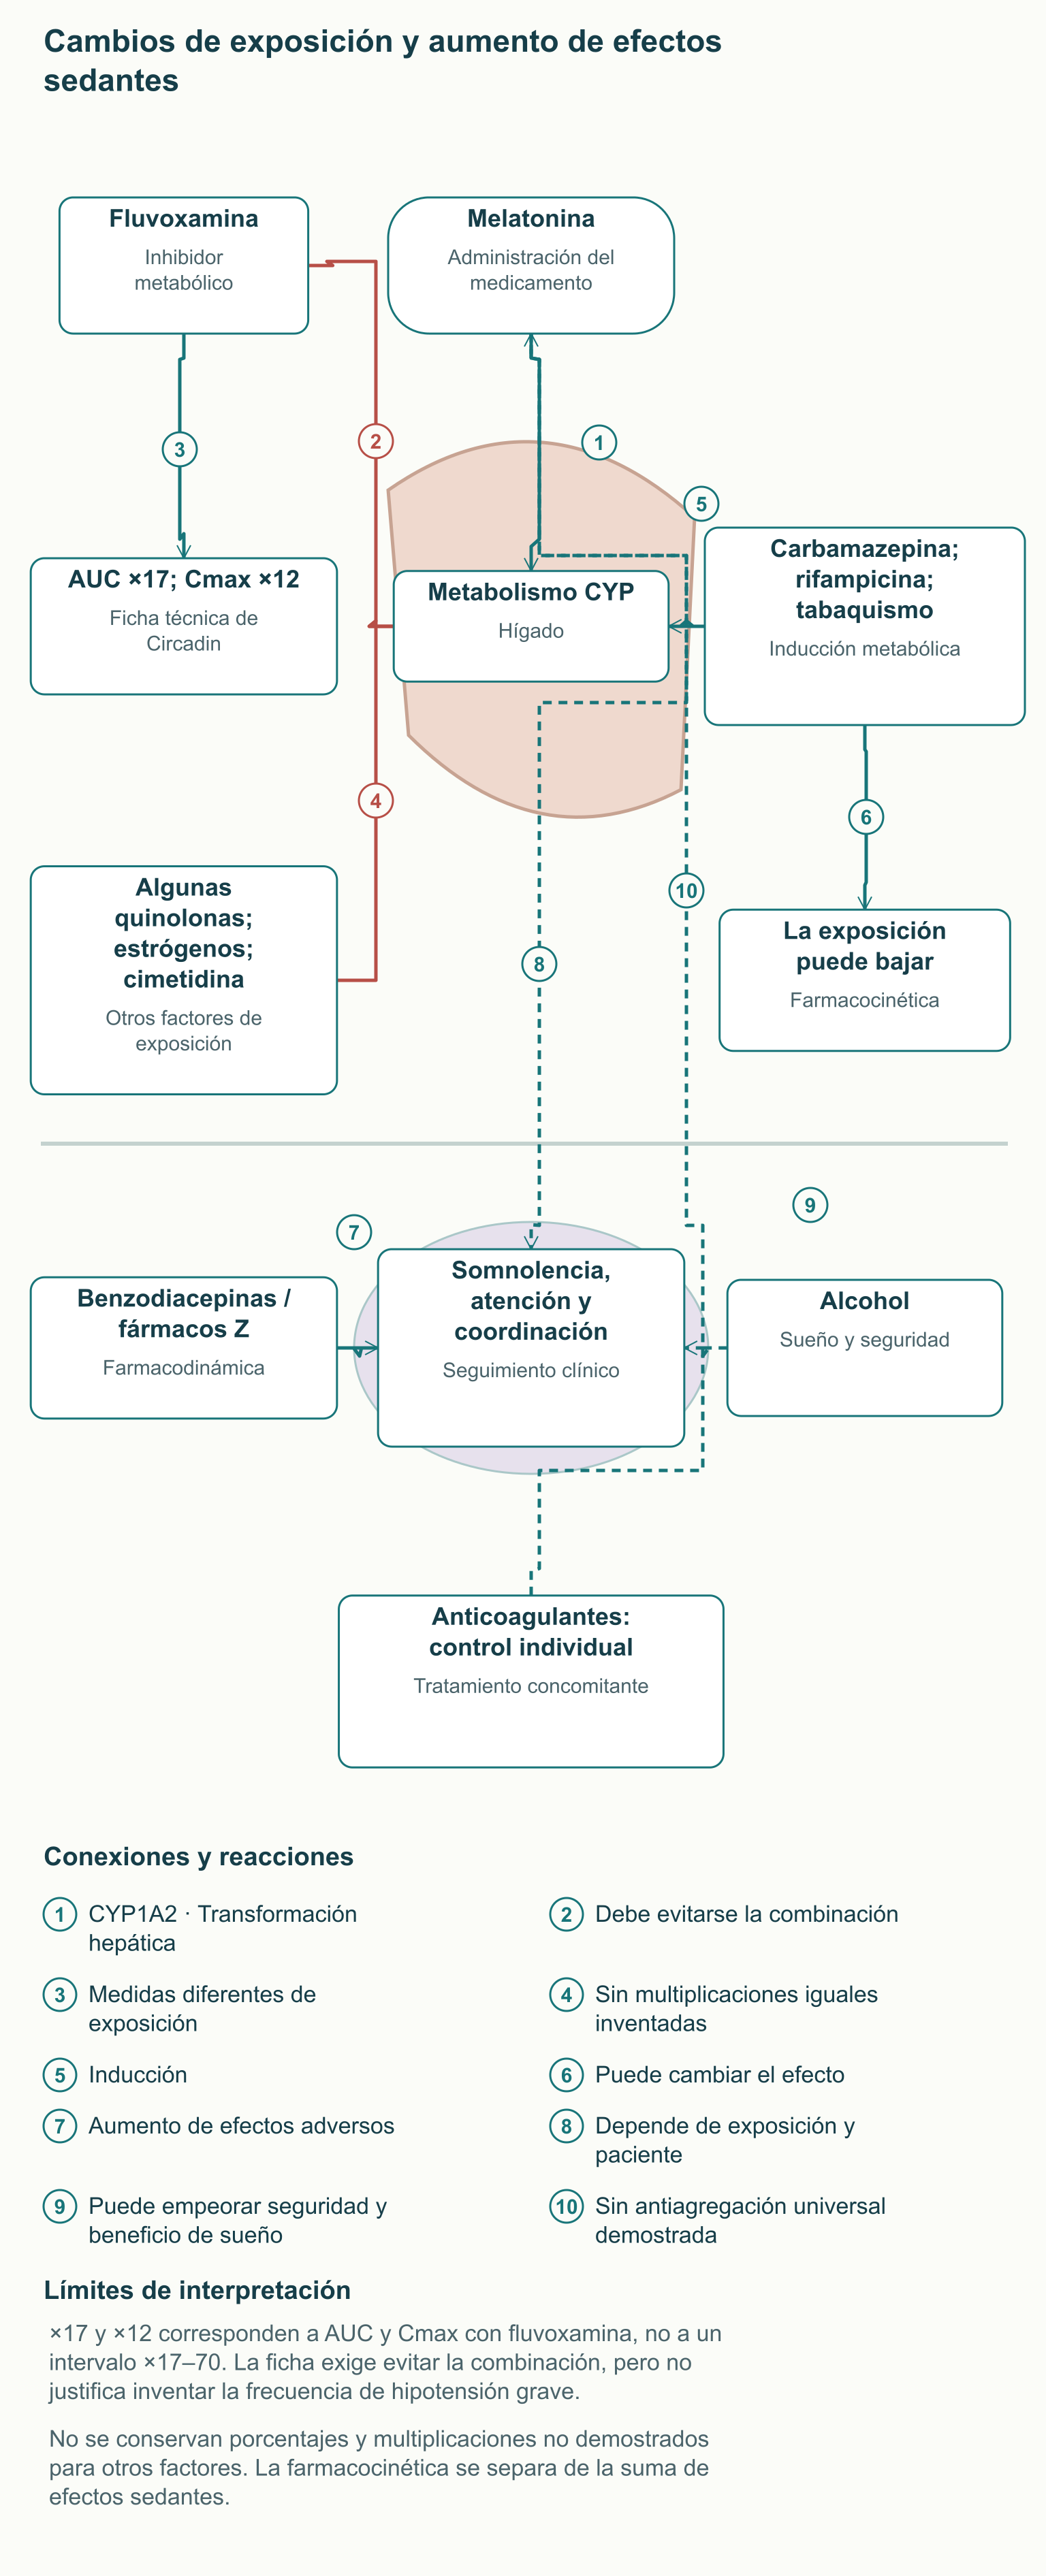
La fluvoxamina es un ejemplo importante de interacción farmacocinética. Según la ficha técnica de Circadin, eleva AUC de melatonina aproximadamente 17 veces y Cmax 12 veces; la combinación debe evitarse. Son medidas precisas y diferentes, por lo que no deben fundirse en un intervalo de «17–70 veces» ni acompañarse de una frecuencia inventada de hipotensión grave. Un cambio considerable de exposición exige atención aunque la dosis inicial de la tableta parezca pequeña.
Otros inhibidores metabólicos, entre ellos algunas quinolonas, pueden aumentar la exposición, y la ficha técnica también menciona estrógenos y cimetidina como factores de interacción. Por el contrario, carbamazepina, rifampicina y tabaquismo pueden reducir la concentración al inducir sistemas enzimáticos. No puede inventarse la misma multiplicación para cada situación sin un estudio propio. Empezar o dejar de fumar también puede cambiar el contexto metabólico, de modo que una dosis habitual estable no siempre significa exposición estable.
Una interacción farmacodinámica es distinta de un cambio de concentración. Las benzodiacepinas y algunos hipnóticos del grupo Z pueden aumentar los trastornos de atención, coordinación y somnolencia al combinarse con melatonina; el alcohol puede empeorar el beneficio esperado sobre el sueño y aumentar las conductas inseguras. En el caso de warfarina y otros medicamentos que exigen control preciso, la combinación se comenta con el profesional tratante, pero no debe declararse melatonina un antiagregante universal demostrado. El motivo de precaución y el plan de seguimiento deben ser específicos para el medicamento y el paciente.
Los posibles efectos adversos incluyen somnolencia, mareo y cefalea, y tras la administración debe considerarse la capacidad para conducir con seguridad. El uso de Circadin está limitado en enfermedad hepática, exige cautela en enfermedad renal y la insuficiencia de datos influye en las recomendaciones para trastornos autoinmunes. La ficha tampoco recomienda su uso durante embarazo y lactancia por falta de datos pertinentes. La información de una formulación no demuestra igual seguridad para todas las dosis altas, todos los suplementos y todas las edades.
La calidad del producto es relevante en la práctica, especialmente en un suplemento con contenido declarado pequeño. En el análisis de productos comerciales de Erland y Saxena se encontraron desviaciones del contenido de melatonina respecto a la etiqueta de −83% a +478%, y serotonina en parte de las muestras. Es un estudio de una muestra concreta del mercado, no una afirmación de que cualquier producto actual tenga necesariamente esa desviación. Sin embargo, muestra por qué una formulación farmacológica registrada y una fabricación fiable importan tanto como calcular las décimas de miligramo deseadas.
Momento de administración: trastorno circadiano, insomnio y desfase horario
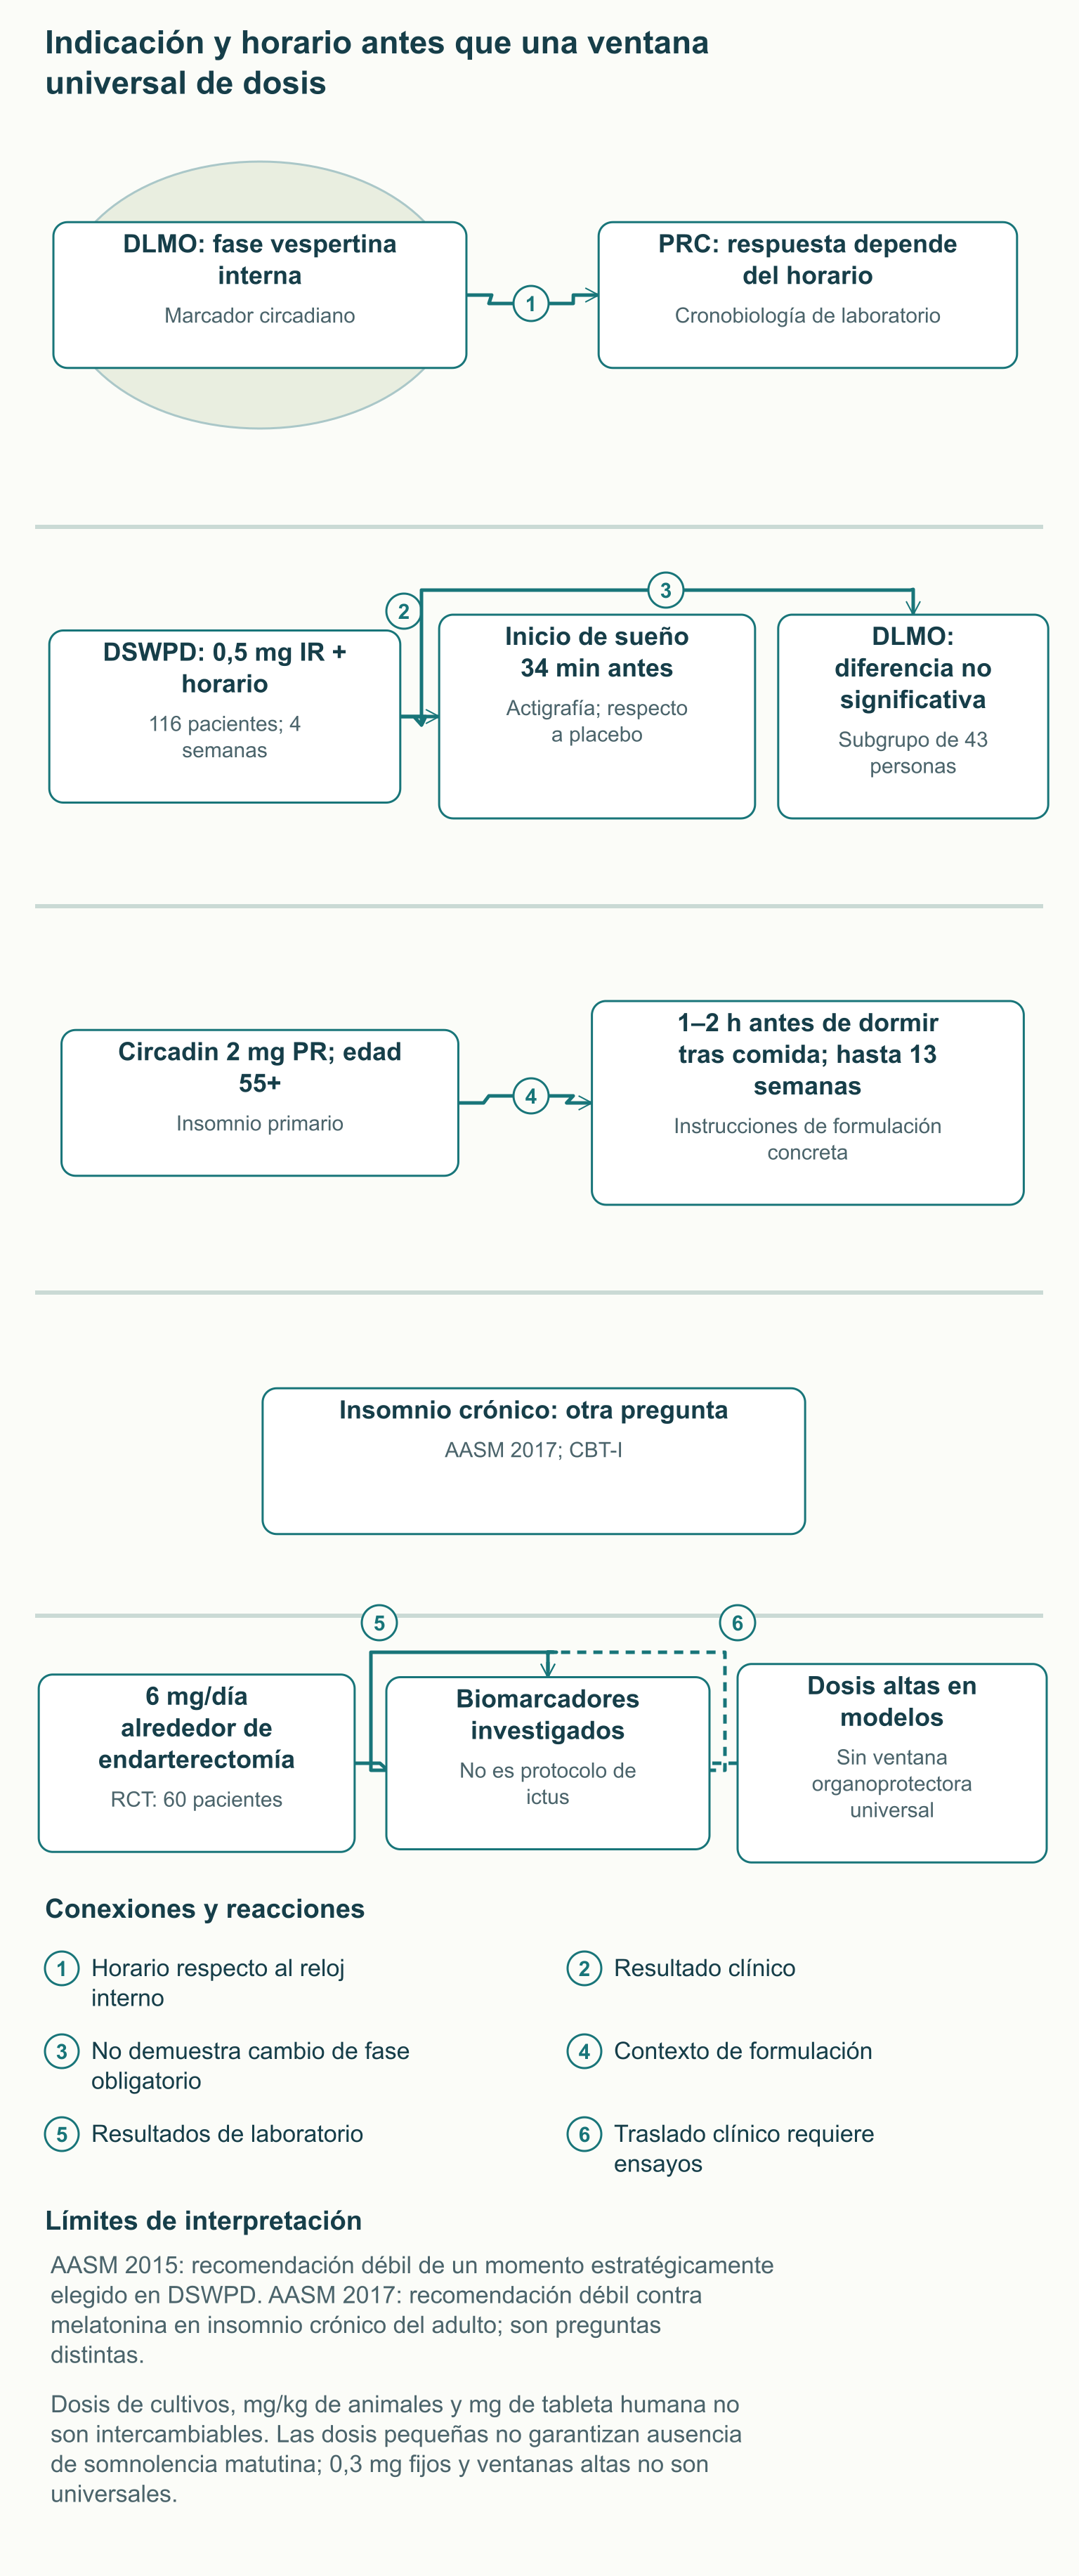
Un cronobiótico modifica la fase del reloj biológico, mientras que el efecto inmediato sobre conciliar el sueño es otro resultado. DLMO, el inicio del aumento vespertino de melatonina con luz tenue, es uno de los marcadores de fase interna. La curva de respuesta de fase, PRC, muestra cómo dependen la dirección y la magnitud del cambio del momento de administración respecto a esa fase. Por ello, una misma dosis puede actuar de forma distinta en diferentes momentos biológicos, y prescribir «a las 22:00 para todos» no constituye un protocolo cronobiológico completo.
En un estudio de laboratorio humano, Burgess y colaboradores compararon respuestas de fase a tres días sucesivos de 0,5 mg con datos previos de 3 mg obtenidos con el mismo protocolo. Ambas dosis podían desplazar la fase, pero el momento óptimo respecto al ritmo endógeno difería. Esto explica por qué aumentar la dosis no sustituye elegir el momento. Tampoco significa que cada paciente deba recibir 0,3 mg exactamente cuatro–cinco horas antes de dormir: el tiempo respecto a acostarse habitualmente y el tiempo respecto a DLMO son referencias distintas.
En el trastorno de retraso de fase de sueño-vigilia, DSWPD, la persona suele poder dormir normalmente con su propio horario tardío, pero tiene dificultades para dormirse y despertarse antes. En su guía de 2015, AASM formuló una recomendación débil de melatonina administrada en un momento estratégicamente calculado para los pacientes correspondientes. Una recomendación débil implica certeza limitada y necesidad de considerar las circunstancias, no ausencia de fundamento fisiológico. No establece una única dosis universal ni se extiende automáticamente a cualquier queja de «no puedo dormirme».
El ensayo de Sletten incluyó a 116 pacientes con DSWPD y retraso confirmado del ritmo de melatonina respecto al sueño deseado. Recibieron 0,5 mg de liberación rápida o placebo una hora antes de acostarse a la hora deseada durante cuatro semanas, junto con un horario conductual. Según actigrafía, el inicio del sueño fue 34 minutos más temprano respecto a placebo; el intervalo de confianza del 95% correspondía aproximadamente a 8–60 minutos de adelanto. La actigrafía estima sueño a partir del movimiento y no es polisomnografía, de modo que llamar PSG a ese resultado es incorrecto.
En un subgrupo de 43 participantes, la diferencia de cambio de DLMO entre grupos no fue estadísticamente significativa. Por tanto, el ensayo respalda el efecto clínico de ese régimen combinado, pero no demuestra un gran desplazamiento de fase en cada paciente. Parte del beneficio pudo relacionarse con facilitar el sueño en el momento elegido, y el horario conductual formaba parte de ambos grupos. El trabajo no estableció eficacia o seguridad prolongadas más allá de las cuatro semanas estudiadas.
En el insomnio crónico del adulto la pregunta clínica es otra: dormir sigue siendo difícil pese a disponer de suficiente oportunidad y de un horario adecuado. La guía AASM de 2017 contiene una recomendación débil contra melatonina para problemas de inicio o mantenimiento del sueño en ese contexto. No anula la recomendación para DSWPD ni prohíbe todas las formulaciones registradas en todos los países. Para insomnio crónico, AASM recomienda por separado terapia cognitivo-conductual multicomponente para insomnio, CBT-I, que aborda la conducta y los mecanismos persistentes que mantienen el trastorno.
En el desfase horario importan la dirección del vuelo, el número de husos horarios, el horario local y la exposición a luz. La melatonina se ha investigado en este contexto, pero el momento de tomarla no puede reducirse a una misma hora para cualquier ruta. Un momento inadecuado puede producir somnolencia no deseada o interferir con la dirección necesaria de adaptación. Por ello, el plan práctico debe considerar el tiempo interno y el horario previsto en destino, no solo una etiqueta de «para viajes».
Dosis clínicas y protección orgánica en investigación
Dosis pequeñas de melatonina pueden generar un efecto de señalización relevante porque el sistema receptor es sensible a concentraciones bajas. Sin embargo, el término «dosis fisiológica» depende de la edad, la formulación y la farmacocinética individual. En un pequeño estudio de Zhdanova en mayores de 50 años se compararon 0,1, 0,3 y 3 mg con placebo en períodos de una semana, 30 minutos antes de dormir; había 15 participantes con sueño normal y 15 con eficiencia de sueño reducida. La polisomnografía mostró mejoría de eficiencia en el grupo correspondiente, mientras que 3 mg podían mantener melatonina elevada durante el día.
El experimento explica el interés por dosis pequeñas, pero no convierte 0,3 mg en tratamiento obligatorio de cualquier trastorno del sueño. Su población y duración difieren del estudio de DSWPD y de los trabajos con liberación prolongada. Circadin tiene un régimen registrado de 2 mg PR para insomnio primario con mala calidad de sueño en pacientes de 55 años o más: una–dos horas antes de dormir después de comer, hasta 13 semanas. Este régimen corresponde a un medicamento e indicación concretos; una tableta cualquiera de 2 mg de liberación inmediata no se vuelve equivalente.
Las dosis altas de los estudios de protección celular u orgánica responden a otra tarea, pero no existe una frontera universal demostrada entre intervalos «cronobióticos» y «organoprotectores». El contenido en sangre no establece automáticamente la concentración de melatonina en una diana mitocondrial. Los miligramos por kilogramo en ratón, la concentración micromolar en cultivo y los miligramos de una tableta humana no son unidades intercambiables de exposición. Tampoco debe presentarse como regla clínica la desensibilización receptora con cualquier dosis de 3–10 mg sin datos apropiados.
El estudio de Zhao investigó la hipótesis neuroprotectora tanto en un modelo animal de isquemia-reperfusión como en un pequeño ensayo aleatorizado de 60 pacientes sometidos a endarterectomía carotídea. En la parte humana se administraron 6 mg diarios desde tres días antes de la cirugía hasta tres días después y se evaluaron biomarcadores inflamatorios y oxidativos. Es un ejemplo importante del paso del modelo al ser humano, pero los biomarcadores alrededor de una cirugía vascular programada no equivalen a demostrar tratamiento del ictus agudo. Este trabajo no permite prescribir 10–20 mg a todos los pacientes para prevenir discapacidad neurológica.
Los modelos de sepsis en ratón también han estudiado el inflamasoma NLRP3, un sistema proteico implicado en la maduración de señales inflamatorias. Comparar animales normales y modificados genéticamente ayuda a esclarecer el papel de NLRP3 y NF-κB en la respuesta tisular a daño y administración de melatonina. En estos experimentos, la participación de RORα funcional en una respuesta transcripcional particular no demuestra unión directa de melatonina a esa proteína nuclear. Los cambios de estas vías ofrecen un fundamento investigador, pero no establecen una dosis estándar para sepsis, ARDS o la llamada tormenta de citocinas en humanos.
La misma limitación afecta a oncología, sepsis y otras áreas donde melatonina se investiga como intervención complementaria. Las dosis de 3–20, 10–40 o 50 mg de publicaciones heterogéneas no forman un protocolo único demostrado de «protección metabólica». Para ello se requieren datos sobre una enfermedad, formulación, combinación con tratamiento estándar, resultados clínicos y efectos adversos concretos. Disponer de mecanismos celulares convincentes favorece la investigación, pero no sustituye sus resultados ni justifica abandonar una terapia eficaz.
Formas de administración y elección del producto
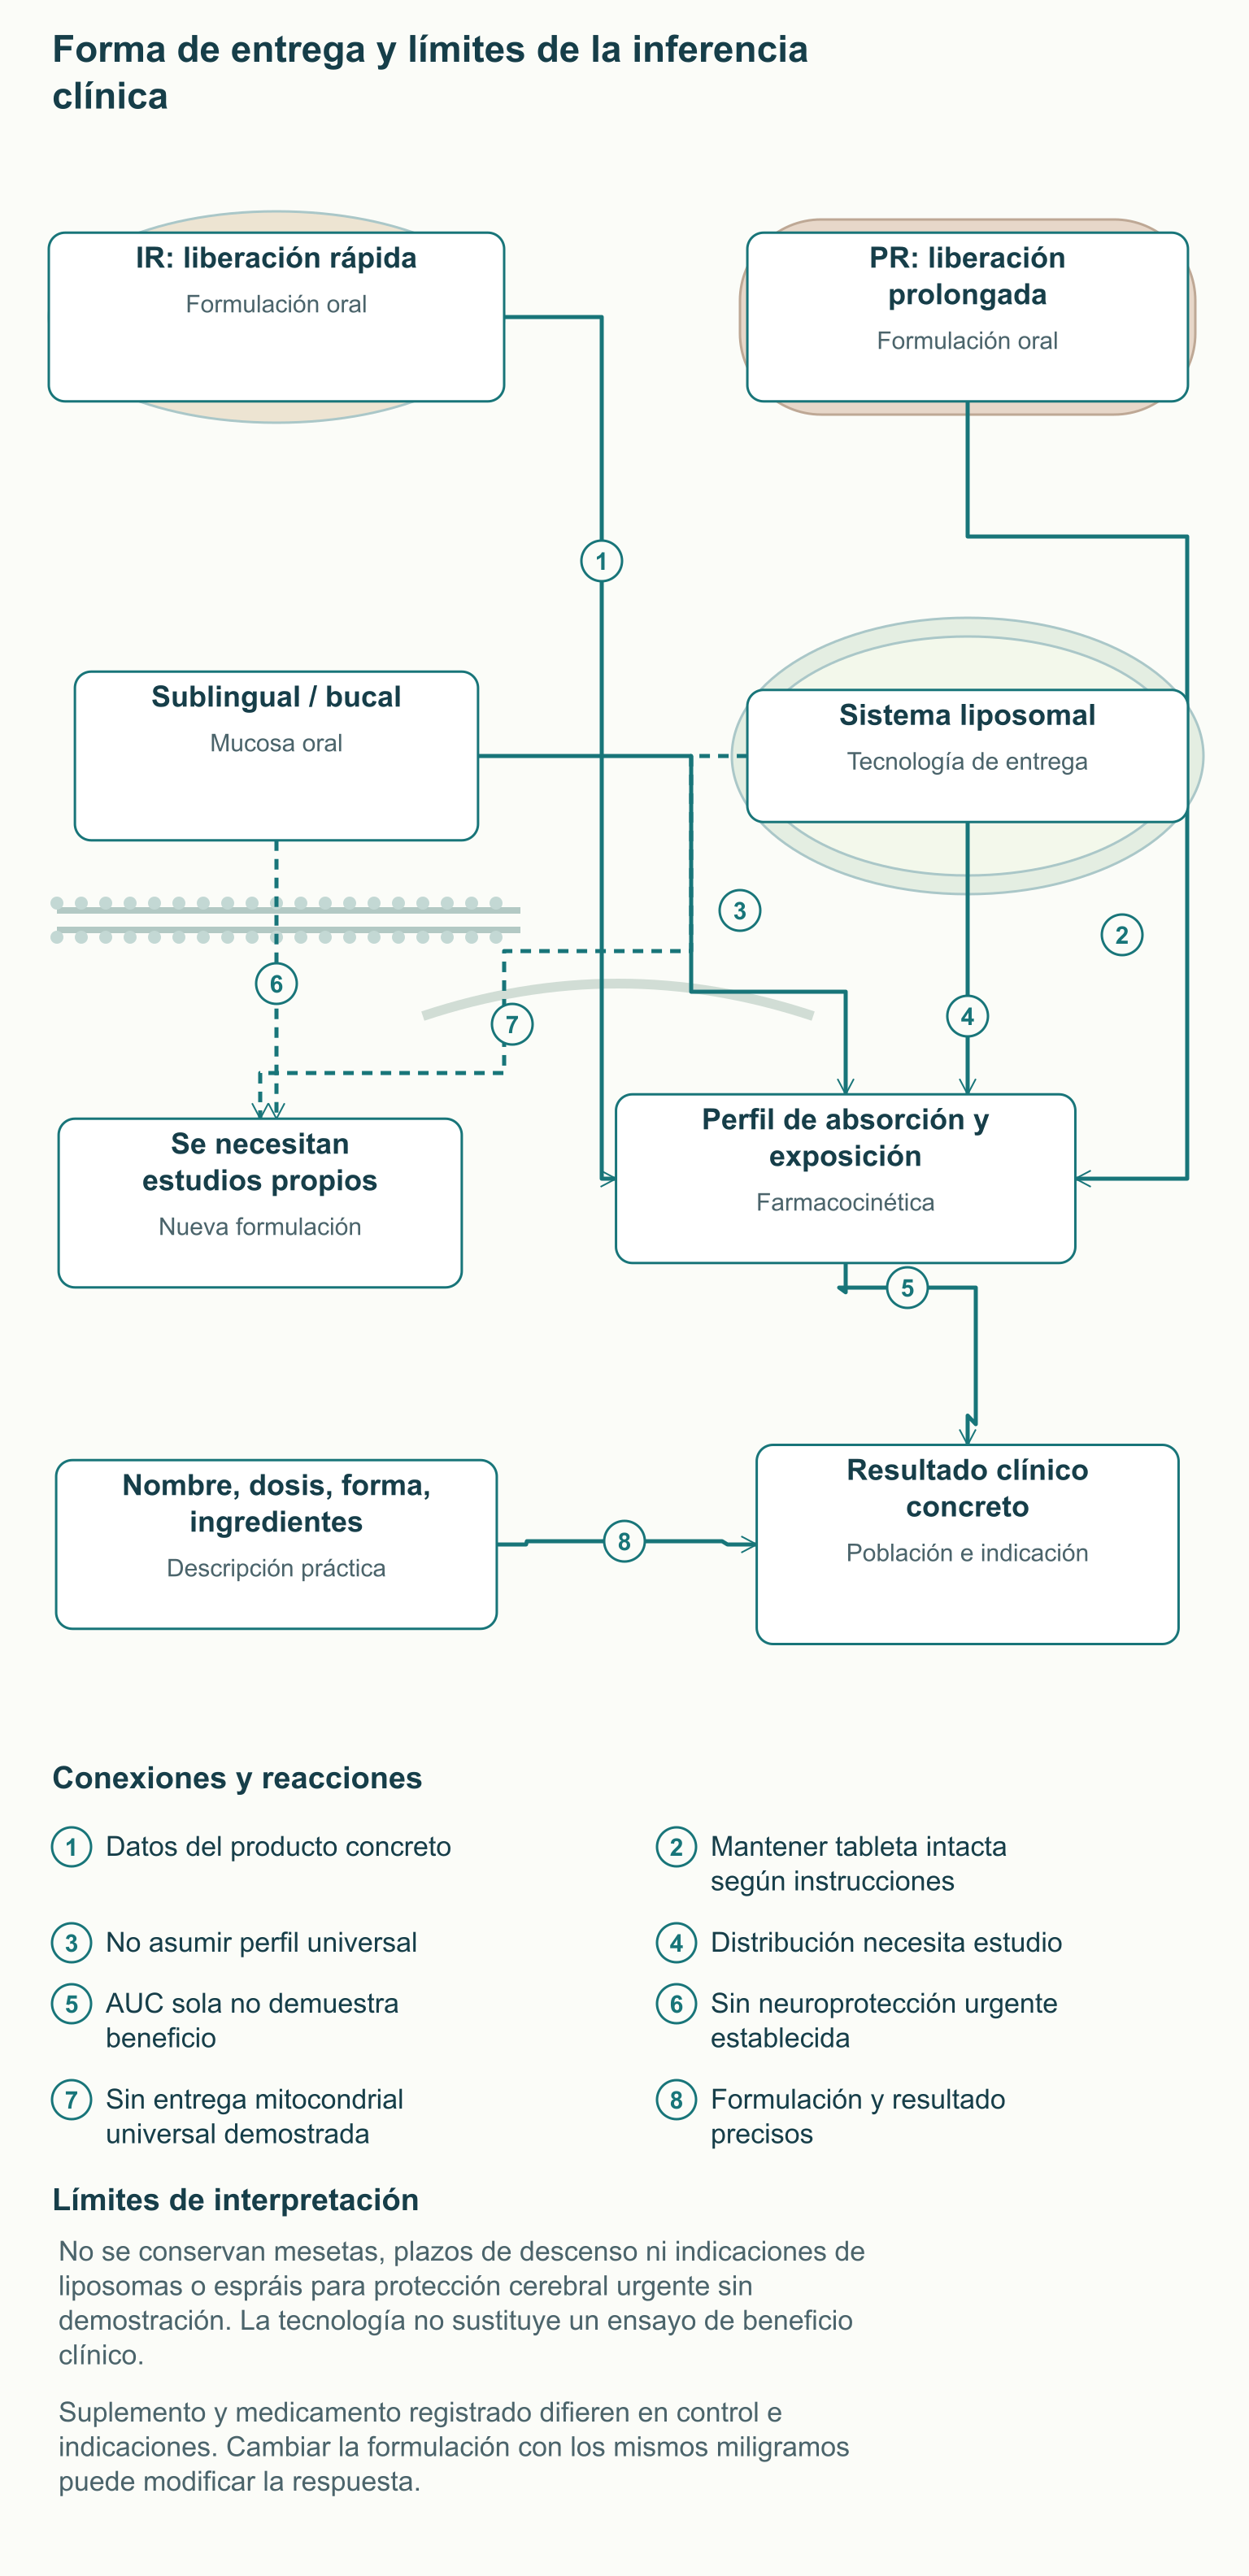
La formulación tiene una función: controlar la velocidad de aporte y la reproducibilidad de la exposición. Para IR y PR importa conocer no solo la dosis, sino las instrucciones de administración, el efecto de comida y la posibilidad de modificar la tableta. Un medicamento de liberación prolongada no suele poder triturarse arbitrariamente si se altera la liberación prevista. Si se necesita un perfil concreto de melatonina, la formulación debe elegirse según el objetivo clínico, no por suponer que un pico más rápido necesariamente sea mejor.
Forma
Qué modifica
Qué exige una conclusión clínica
Oral IR
Liberación más rápida; el perfil depende del producto
Estudio de la población, momento y resultado pertinentes
Oral PR
Aporte más prolongado desde la formulación
Datos del medicamento concreto y cumplimiento de sus instrucciones
Sublingual o bucal
Puede modificar la vía de absorción y el metabolismo presistémico
Farmacocinética propia; no puede prometerse neuroprotección de urgencia
Liposomal y otros sistemas
Puede modificar distribución y estabilidad
Estudios de seguridad, entrega y beneficio clínico
Un espray sublingual o una presentación liposomal no demuestran llegada al cerebro en una concentración protectora ni convierten el producto en tratamiento de urgencia. Para ello hacen falta datos directos de distribución y después estudios del resultado clínico correspondiente. La novedad tecnológica puede ser interesante, pero no permite saltarse etapas de desarrollo por la palabra comercial «biodisponible». Incluso un aumento importante de AUC no demuestra por sí solo un mejor equilibrio entre beneficios y efectos adversos.
La elección entre suplemento y medicamento también depende de la regulación local y de las indicaciones disponibles. El profesional debe registrar nombre exacto, cantidad de melatonina, tipo de liberación e ingredientes acompañantes. En combinación con extractos vegetales u otras sustancias sedantes, los efectos ya no pueden atribuirse solo a melatonina. Cambiar de producto manteniendo la misma etiqueta de «2 mg» puede alterar la respuesta, de modo que la evaluación debe considerar tanto la formulación como el origen del producto.
Indicadores de laboratorio y seguimiento práctico
DLMO es útil cuando hay que precisar la fase circadiana, pero su determinación exige un protocolo adecuado. Las muestras de saliva o sangre se recogen en serie con iluminación tenue controlada y empezando suficientemente pronto respecto al aumento previsto. La frecuencia de muestreo, la iluminación permitida y el umbral de inicio se eligen según el método y la finalidad del laboratorio. Una ventana universal de «19–23 horas, una vez por hora» puede perder el ritmo de alguien con retraso pronunciado, y una toma reciente de melatonina exógena puede dificultar la interpretación.
El aMT6s urinario se utiliza como indicador del metabolismo de melatonina en un intervalo definido. El resultado depende del horario de recogida, la integridad de la muestra y la normalización, incluida la corrección por creatinina en protocolos apropiados. No revela directamente cuánto se sintetizó dentro de la matriz mitocondrial neuronal. Un valor bajo o alto no permite diagnosticar una «deficiencia de melatonina mitocondrial» universal ni fijar una dosis organoprotectora.
El malondialdehído, 8-OHdG y la relación GSH/GSSG se emplean en preguntas de investigación sobre daño oxidativo y estado redox. Los métodos difieren en especificidad y el propio tratamiento de la muestra puede modificar el valor medido. Estos indicadores no constituyen un panel obligatorio para el uso corriente de melatonina en un trastorno del sueño. Glucosa y HbA1c se evalúan por indicaciones metabólicas, no porque cualquier persona necesite vigilancia analítica ampliada tras la primera tableta.
La atención práctica empieza por describir la queja: horario deseado y real de sueño, despertares nocturnos, somnolencia diurna, luz, trabajo por turnos y medicamentos utilizados. Un diario del sueño ayuda a distinguir un ritmo persistentemente tardío de un horario irregular y a valorar cambios sin sustituir una medida por otra. El ronquido con pausas respiratorias, la somnolencia marcada, síntomas depresivos u otros signos de enfermedad requieren una evaluación diagnóstica independiente. Melatonina no debe ocultar una causa que puede y debe tratarse de otro modo.
Antes de empezar conviene definir uno o varios resultados específicos: momento de conciliación, capacidad para despertar según el horario necesario, calidad del sueño y funcionamiento diurno. Después se evalúan el cumplimiento del momento de toma, la formulación, la tolerancia y la relación de los cambios con el horario conductual. Si no hay resultado, una promesa mecanística de «protección mitocondrial» no justifica aumentar indefinidamente la dosis. La decisión coordinada de continuar, modificar o suspender se apoya en la indicación y la respuesta observada, manteniendo la diferencia entre una biología interesante y un beneficio clínico demostrado.
Preguntas frecuentes
¿La melatonina se produce realmente solo en la pineal?
No, melatonina y sistemas enzimáticos se han detectado fuera de la pineal, incluidos modelos tisulares y mitocondriales. Sin embargo, los datos no permiten calcular proporciones humanas universales del 5% y 95%. La señal nocturna circulante y las mediciones locales requieren interpretaciones diferentes.
¿Un análisis sanguíneo permite conocer la reserva mitocondrial de melatonina?
Un análisis de sangre o saliva caracteriza la señal sistémica medible en un momento concreto. El aMT6s urinario refleja parte del metabolismo durante la recogida. Ninguna de estas medidas cuantifica directamente melatonina en la matriz mitocondrial neuronal.
¿Por qué en el retraso de fase importa más el horario que aumentar la dosis?
La respuesta de fase depende del momento de exposición respecto al reloj interno, de modo que una misma dosis a distintas horas puede producir cambios diferentes. En DSWPD se utiliza un momento estratégicamente elegido junto con horario y manejo de luz. No se reduce a una única hora de administración para todos.
¿En qué se diferencian 0,5 mg IR y 2 mg PR?
No solo difieren en cantidad, sino también en liberación, exposición e indicaciones estudiadas. El régimen de 0,5 mg del ensayo de DSWPD no puede sustituirse por las instrucciones de Circadin 2 mg PR para pacientes de 55 años o más. Formulación y momento se eligen según el objetivo clínico y los datos del producto concreto.
¿Todo el mundo debe dejar tres horas entre comida y melatonina?
No se ha establecido un intervalo universal. El estudio de 845 personas comparó dos horarios de carga de 75 g de glucosa con distinta melatonina endógena, no cualquier cena y medicamento. En diabetes y tratamiento prescrito, el horario se coordina individualmente, considerando también las instrucciones de la formulación.
¿Puede utilizarse melatonina para proteger el cerebro de urgencia?
Los efectos experimentales sobre vías redox, receptores y muerte celular no establecen eficacia de una tableta o espray en ictus agudo. Los pequeños estudios perioperatorios de biomarcadores no sustituyen ensayos de resultados funcionales. Los signos de ictus requieren atención médica estándar inmediata.
¿Qué combinaciones son especialmente importantes?
Fluvoxamina aumenta considerablemente la exposición a melatonina y las instrucciones de Circadin recomiendan evitarla. Los sedantes pueden aumentar somnolencia y alteración de coordinación. Inductores e inhibidores enzimáticos, anticoagulantes y enfermedades concomitantes requieren comentar el régimen concreto.
¿Es obligatorio un panel antioxidante durante el uso?
No se ha establecido un panel obligatorio de MDA, 8-OHdG y GSH/GSSG para el uso habitual en trastornos del sueño. Esos indicadores suelen responder a preguntas investigadoras y dependen del método. El seguimiento considera ante todo indicación, horario de sueño, funcionamiento diurno, tolerancia e indicadores clínicamente justificados.