
Фосфатидилсерин: мембрани, кортизол і клінічні дані
Докладний розбір мембранної асиметрії, PKC, синаптичних сигналів та HPA-осі з розмежуванням клітинних моделей і випробувань за участю людей. Склади PS, дані щодо пам’яті та спорту, дози й обмеження безпеки.
Фосфатидилсерин, або PS, поєднує дві різні галузі науки: організацію клітинних мембран і дослідження харчових добавок для пам’яті та стресової відповіді. У мембранах цей ліпід бере участь у розміщенні сигнальних білків, підтриманні асиметрії бішару та розпізнаванні клітин, які потрібно видалити. У деяких випробуваннях за участю людей змінювалися окремі показники пам’яті або гормональної відповіді на стрес, але результати залежали від складу, популяції та завдання. Для професійного застосування цих даних важливо простежити весь шлях від молекули до виміряного результату: функція власного PS клітини ще не доводить дію прийнятої добавки.
Молекула PS: заряд, жирні кислоти й мембранне оточення
Фосфатидилсерин належить до гліцерофосфоліпідів: гліцероловий каркас несе два жирнокислотні ланцюги та фосфатну групу, сполучену з L-серином. Позначення sn-1 і sn-2 вказують на положення ланцюгів; 18:0 означає 18 атомів вуглецю без подвійних зв’язків, а 22:6 n-3 — докозагексаєнову кислоту DHA. За фізіологічного pH фосфат і карбоксильна група серину заряджені негативно, аміногрупа — позитивно, а сумарний заряд становить приблизно −1. Наявність позитивної групи не робить усю молекулу електрично нейтральною: результуючий негативний заряд допомагає формувати електростатичне оточення внутрішньої поверхні мембрани.
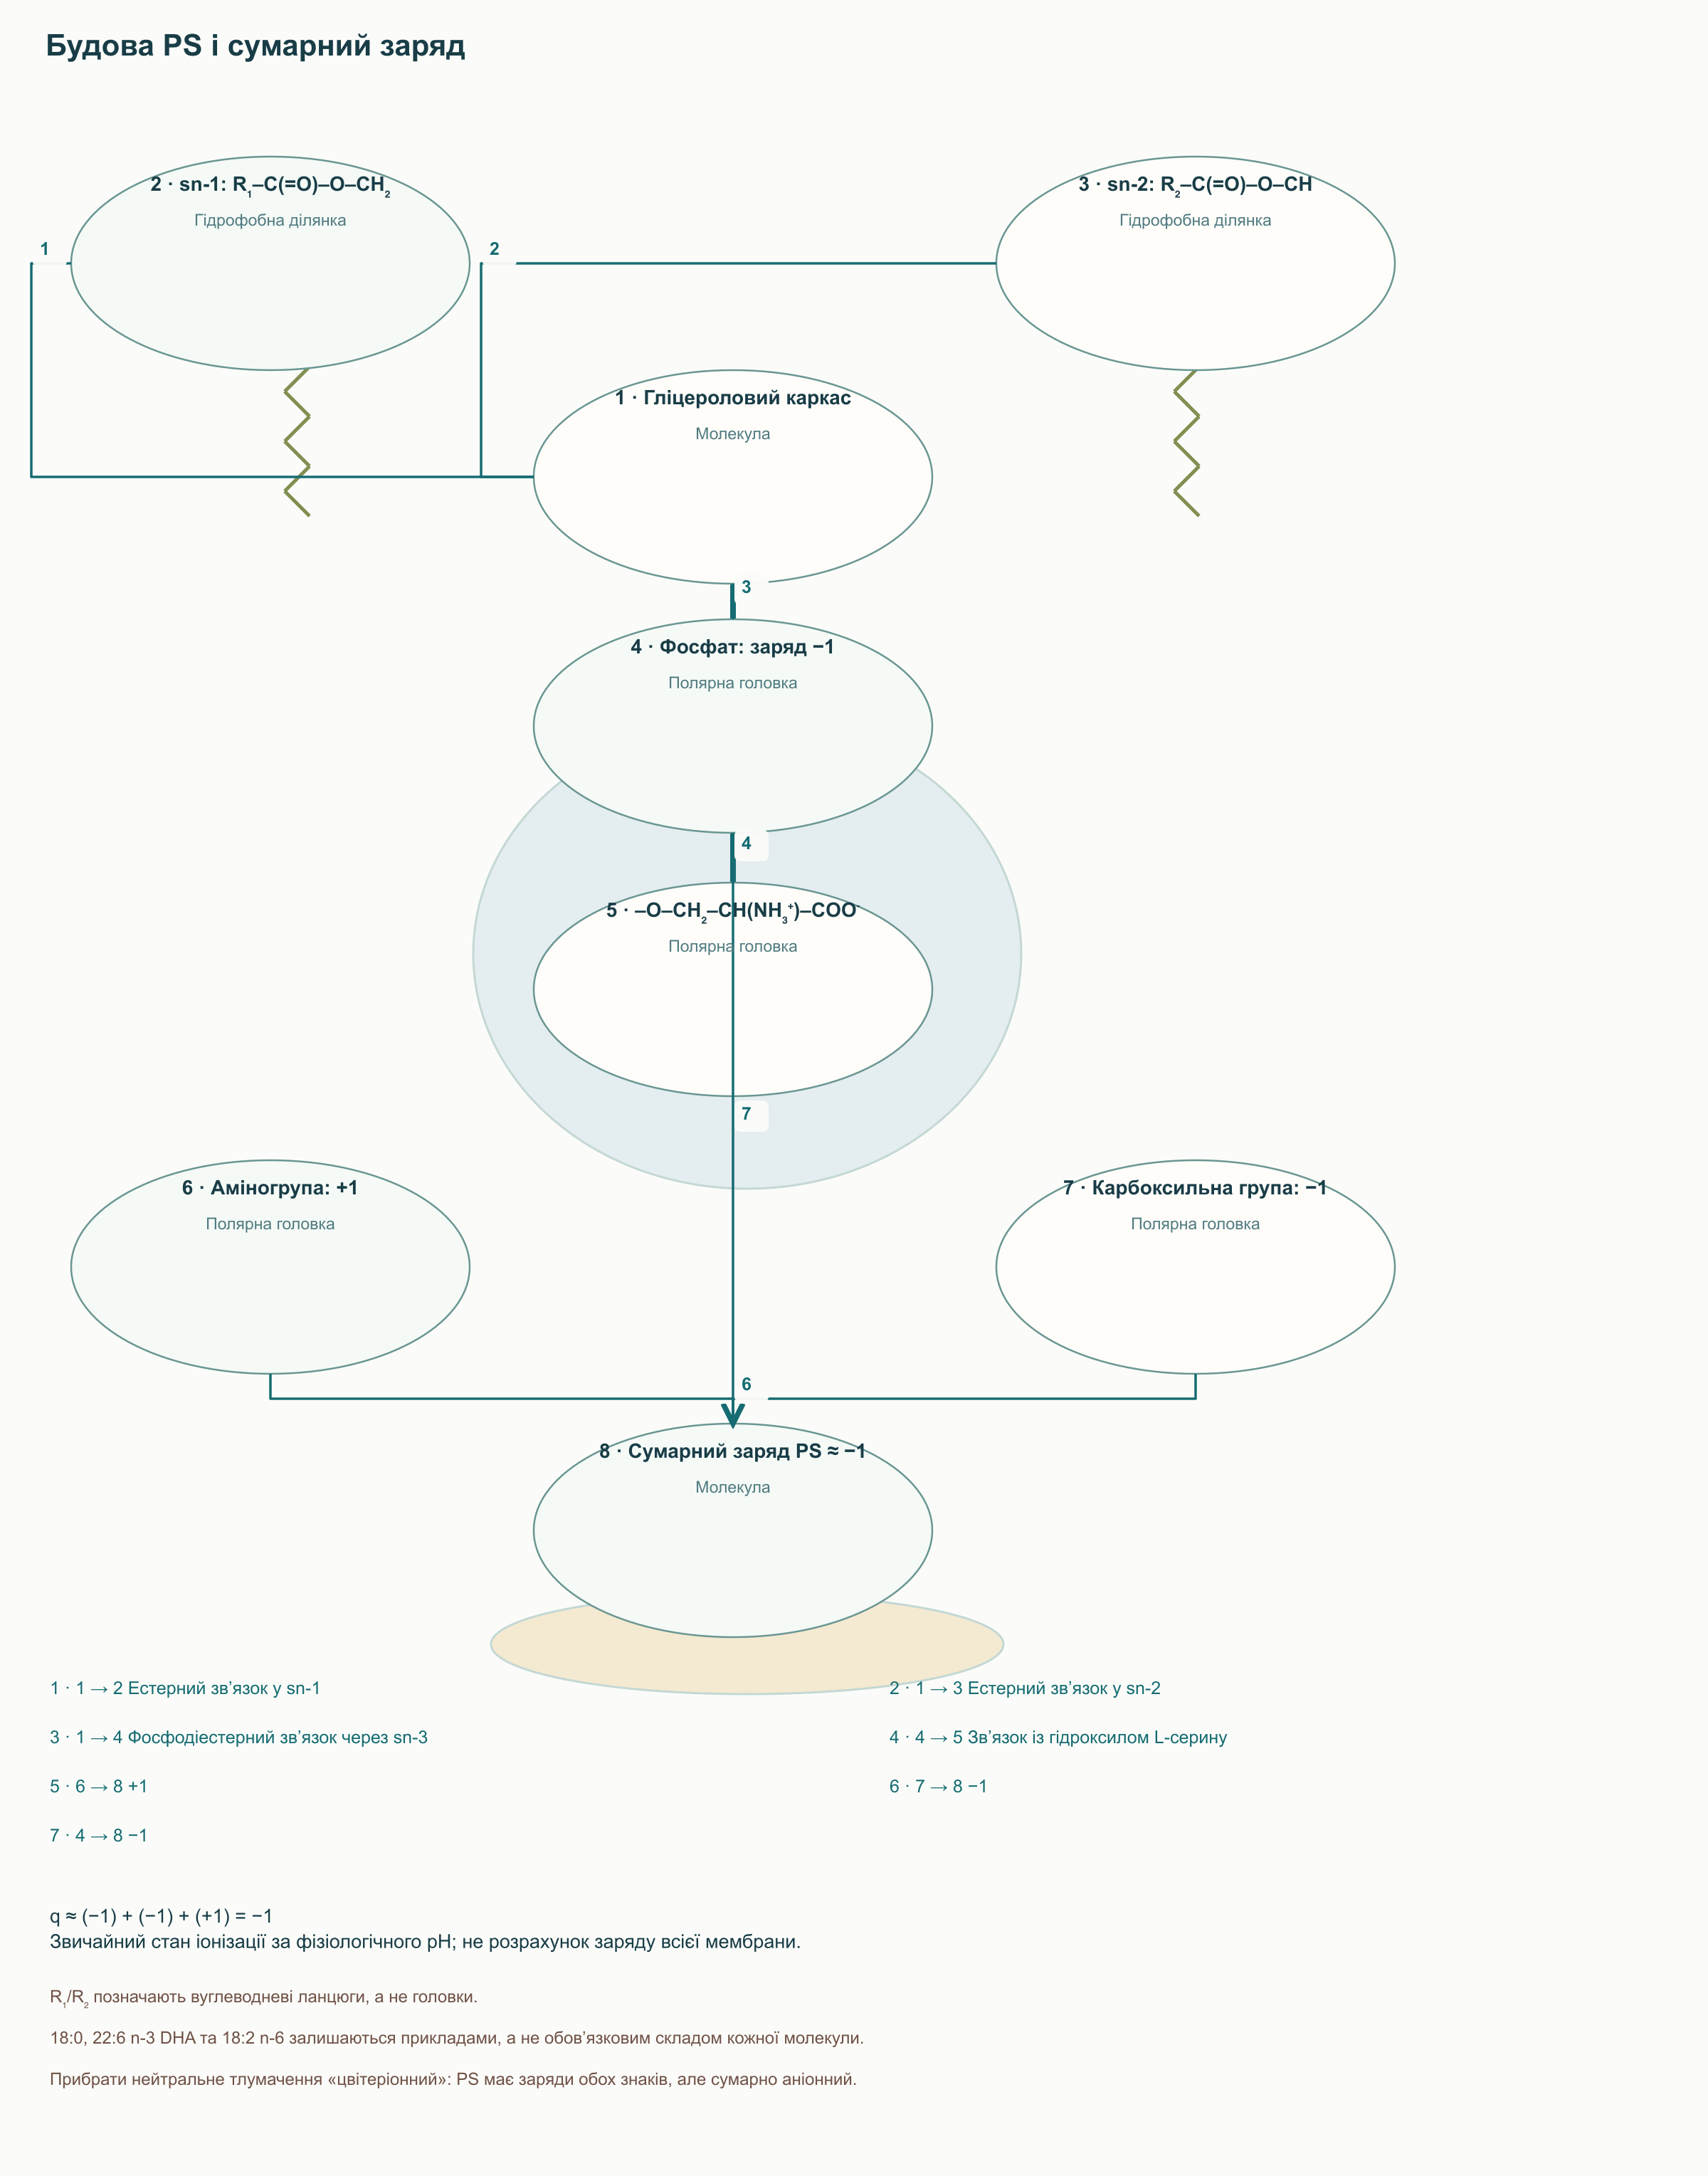
Полярна головка звернена до води, тоді як вуглеводневі ланцюги організовують гідрофобну ділянку бішару. Їхня довжина й ненасиченість впливають на пакування ліпідів та взаємодію з мембранними білками, тому однакова головка PS не означає повної фізичної тотожності його молекулярних видів. У нейрональних моделях DHA-вмісні субстрати сприяють накопиченню певних видів PS, але склад залежить від тканини, віку, виду тварини та досліджуваної мембранної фракції. Часто цитовані відсотки «PS у мозку» без зазначеного знаменника не можна перетворювати на норму для всієї нервової системи або внутрішнього листка кожного синапсу.
Клітини синтезують власний PS переважно шляхом обміну головок в ендоплазматичному ретикулумі. PSS1 головним чином використовує фосфатидилхолін PC, замінюючи холін серином, а PSS2 — фосфатидилетаноламін PE; специфічність очищених ферментів не є цілком неперекривною. У мітохондріях PS-декарбоксилаза, яку кодує PISD, перетворює PS на PE з виділенням CO₂. Цей обмін пов’язує мембранні пули різних органел і пояснює, чому надходження одного фосфоліпіду не можна описувати як просте заповнення готових «порожніх місць» у синапсі.
Асиметрія бішару: фліпази, ABC-транспортери та скрамблази
Два листки плазматичної мембрани відрізняються ліпідним складом: PC і сфінгомієлін переважають зовні, а PS і значна частина PE — з цитозольного боку. Цей розподіл підтримують транспортні білки, а не лише спонтанне розташування молекул. P4-АТФази ATP8A1 і ATP8A2 у комплексі з допоміжним білком CDC50A переносять амінофосфоліпіди до внутрішнього листка, використовуючи гідроліз ATP. Функції ATP8A2 особливо важливі для нервової тканини, але локалізація, вибірковість субстратів і наслідки порушення транспорту залежать від конкретної клітини.
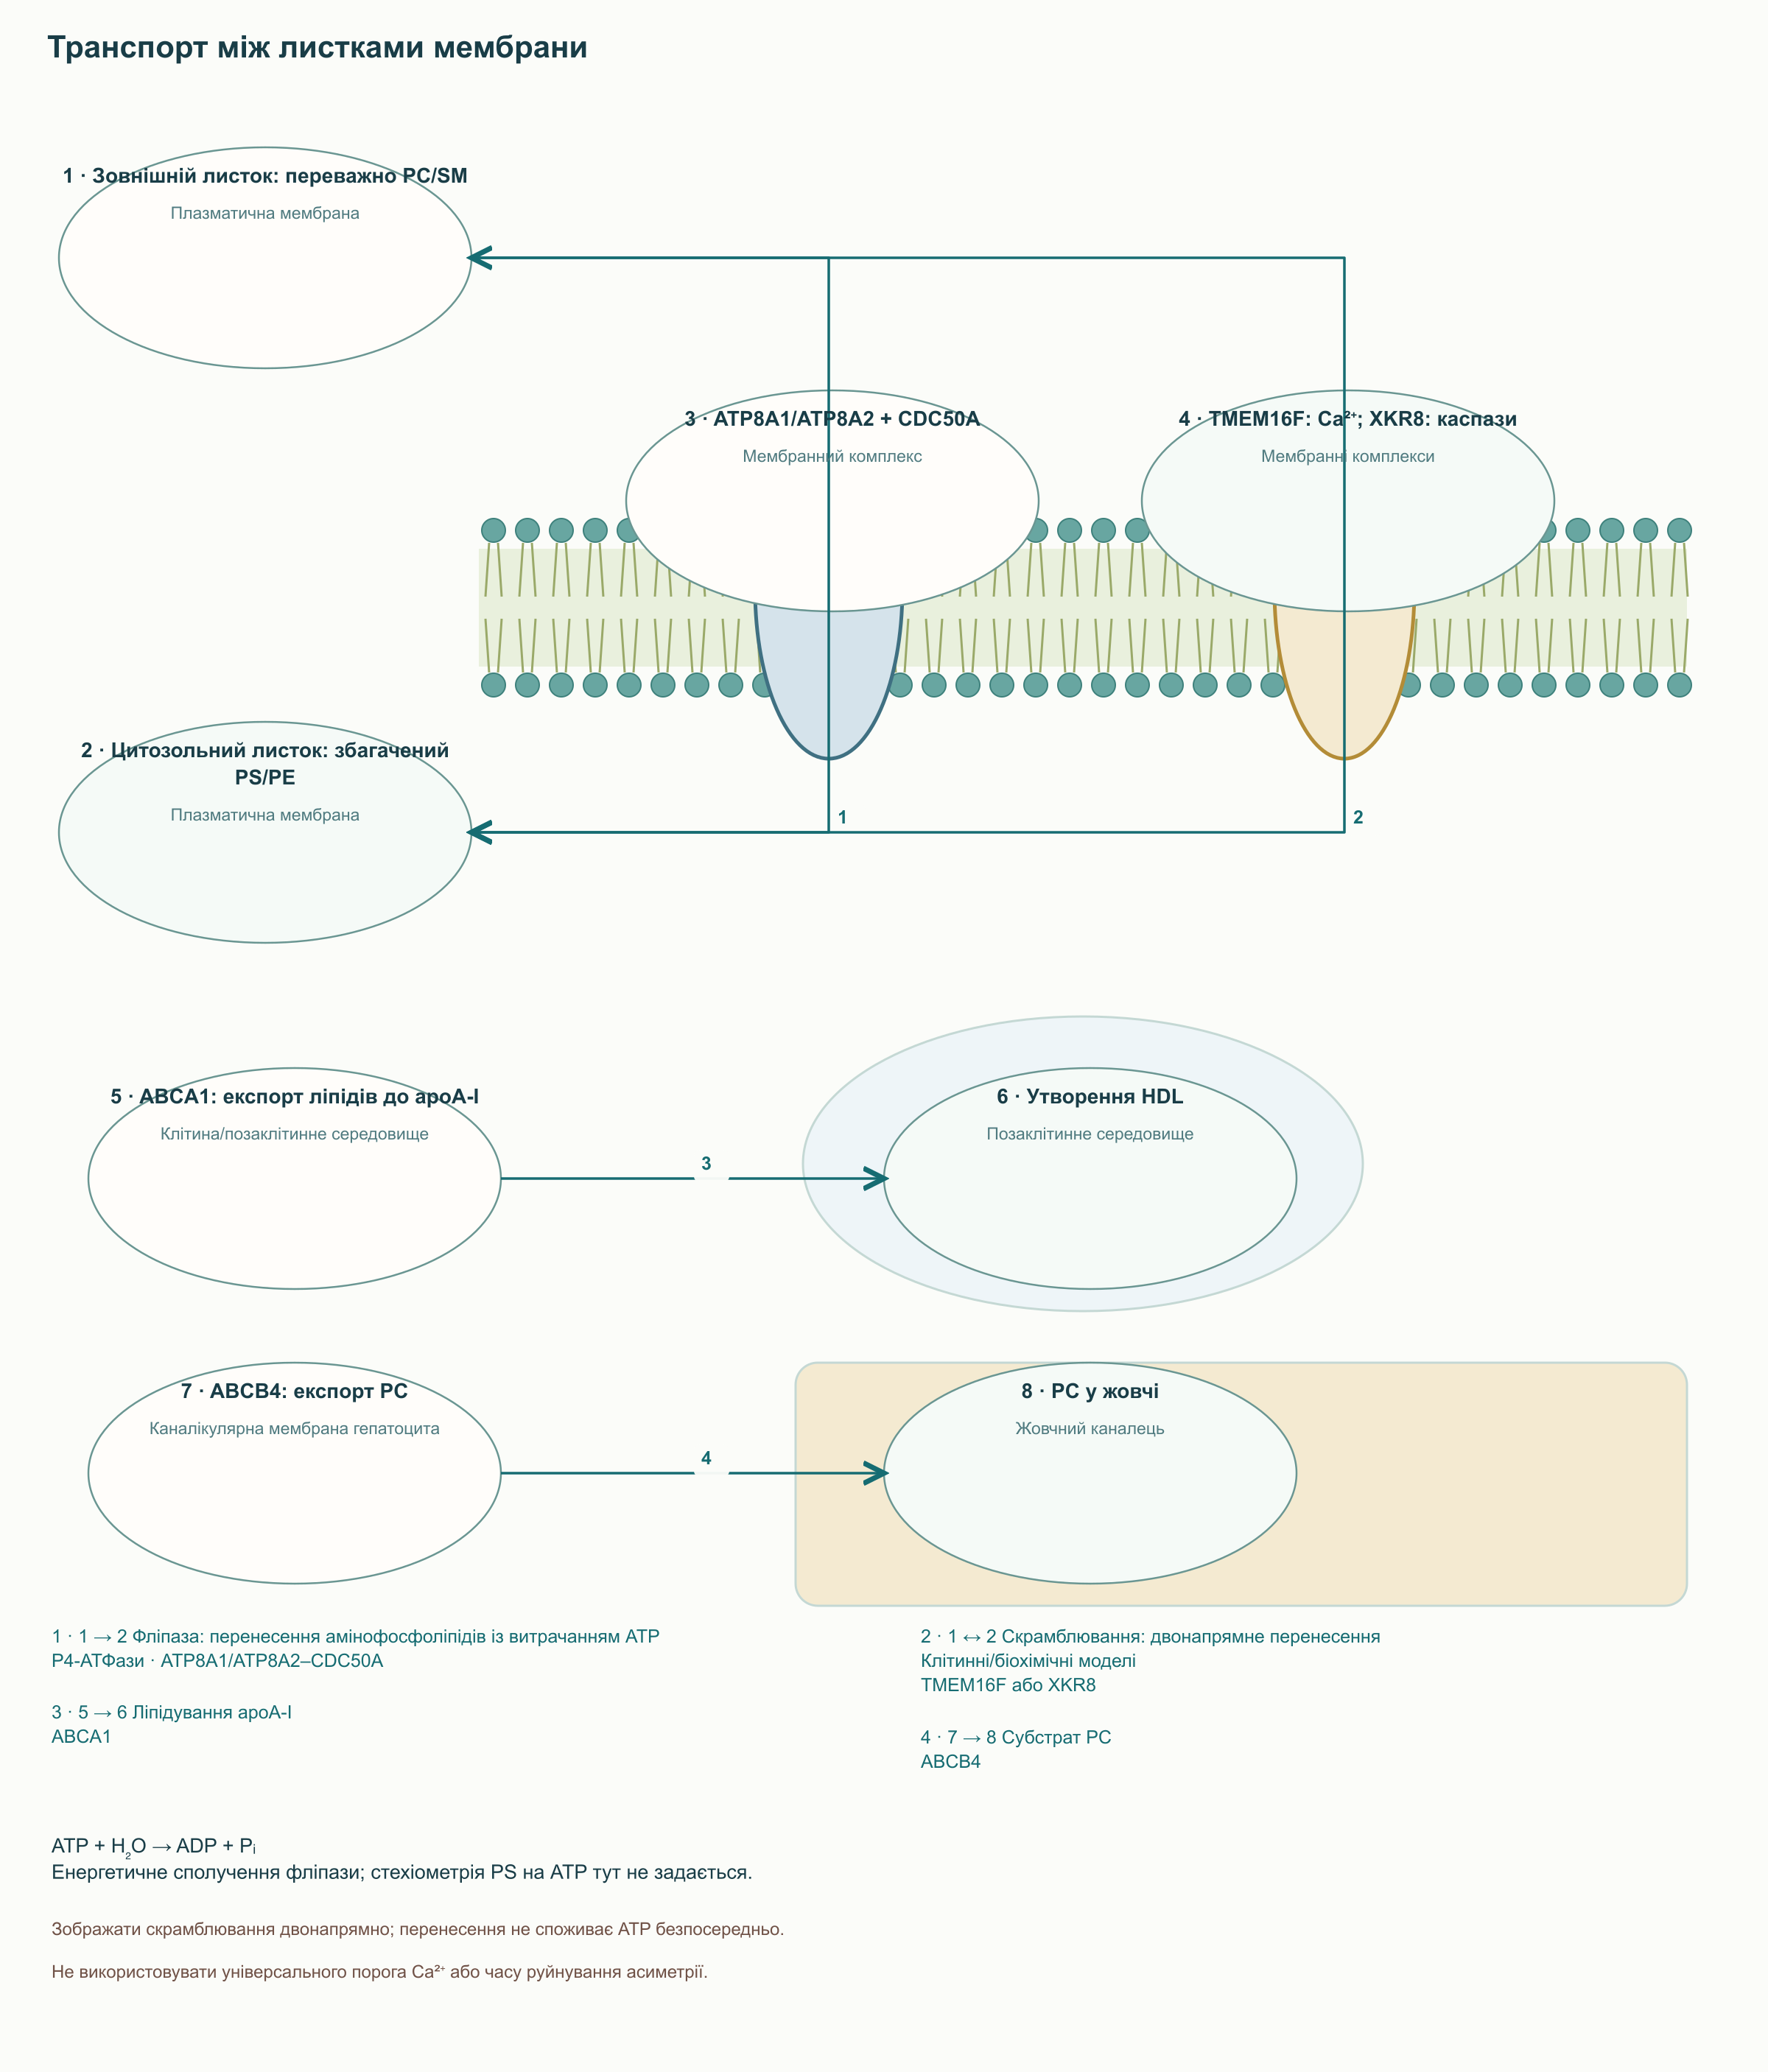
«Флопаза» означає транспорт у протилежному напрямку, але об’єднувати всі ABC-білки в малоселективний насос PS неправильно. ABCA1 бере участь у перенесенні ліпідів до аполіпопротеїну A-I та утворенні HDL; у клітинних експериментах його експресія також змінює експонування окремих фосфоліпідів. ABCB4 має інше спеціалізоване завдання: виведення PC у жовч. Отже, стрілка «ABC → зовнішній PS → HDL» приховує відмінності і між субстратами, і між клітинними компартментами.
Скрамблази перерозподіляють ліпіди двонапрямно без прямого гідролізу ATP, але реагують на різні сигнали. TMEM16F пов’язана з підвищенням цитозольного Ca²⁺, тоді як апоптотична активація XKR8 залежить від розщеплення каспазами. Під час апоптозу каспази також вимикають ATP11A та ATP11C — добре досліджені в цьому процесі фліпази, які не можна довільно замінювати ATP8A2 на схемі. Спільного для всіх клітин порога кальцію або часу повного скрамблювання немає; для тлумачення потрібні експериментальна модель і умови.
PS зовні клітини: розпізнавання, фагоцитоз і коагуляція
Цитозольний PS створює негативно заряджену поверхню, яка може залучати білки з позитивно зарядженими ділянками та специфічними ліпідзв’язувальними доменами. Коли PS виходить назовні, сусідні клітини інакше розпізнають мембрану. За апоптозу цей сигнал сприяє видаленню клітини, але сама PS-позитивність не доводить незворотної загибелі: зовнішній PS з’являється також під час активації тромбоцитів. У їхніх мембранах він сприяє збиранню комплексів згортання, тому значення тієї самої молекули залежить від її розташування та стану клітини.
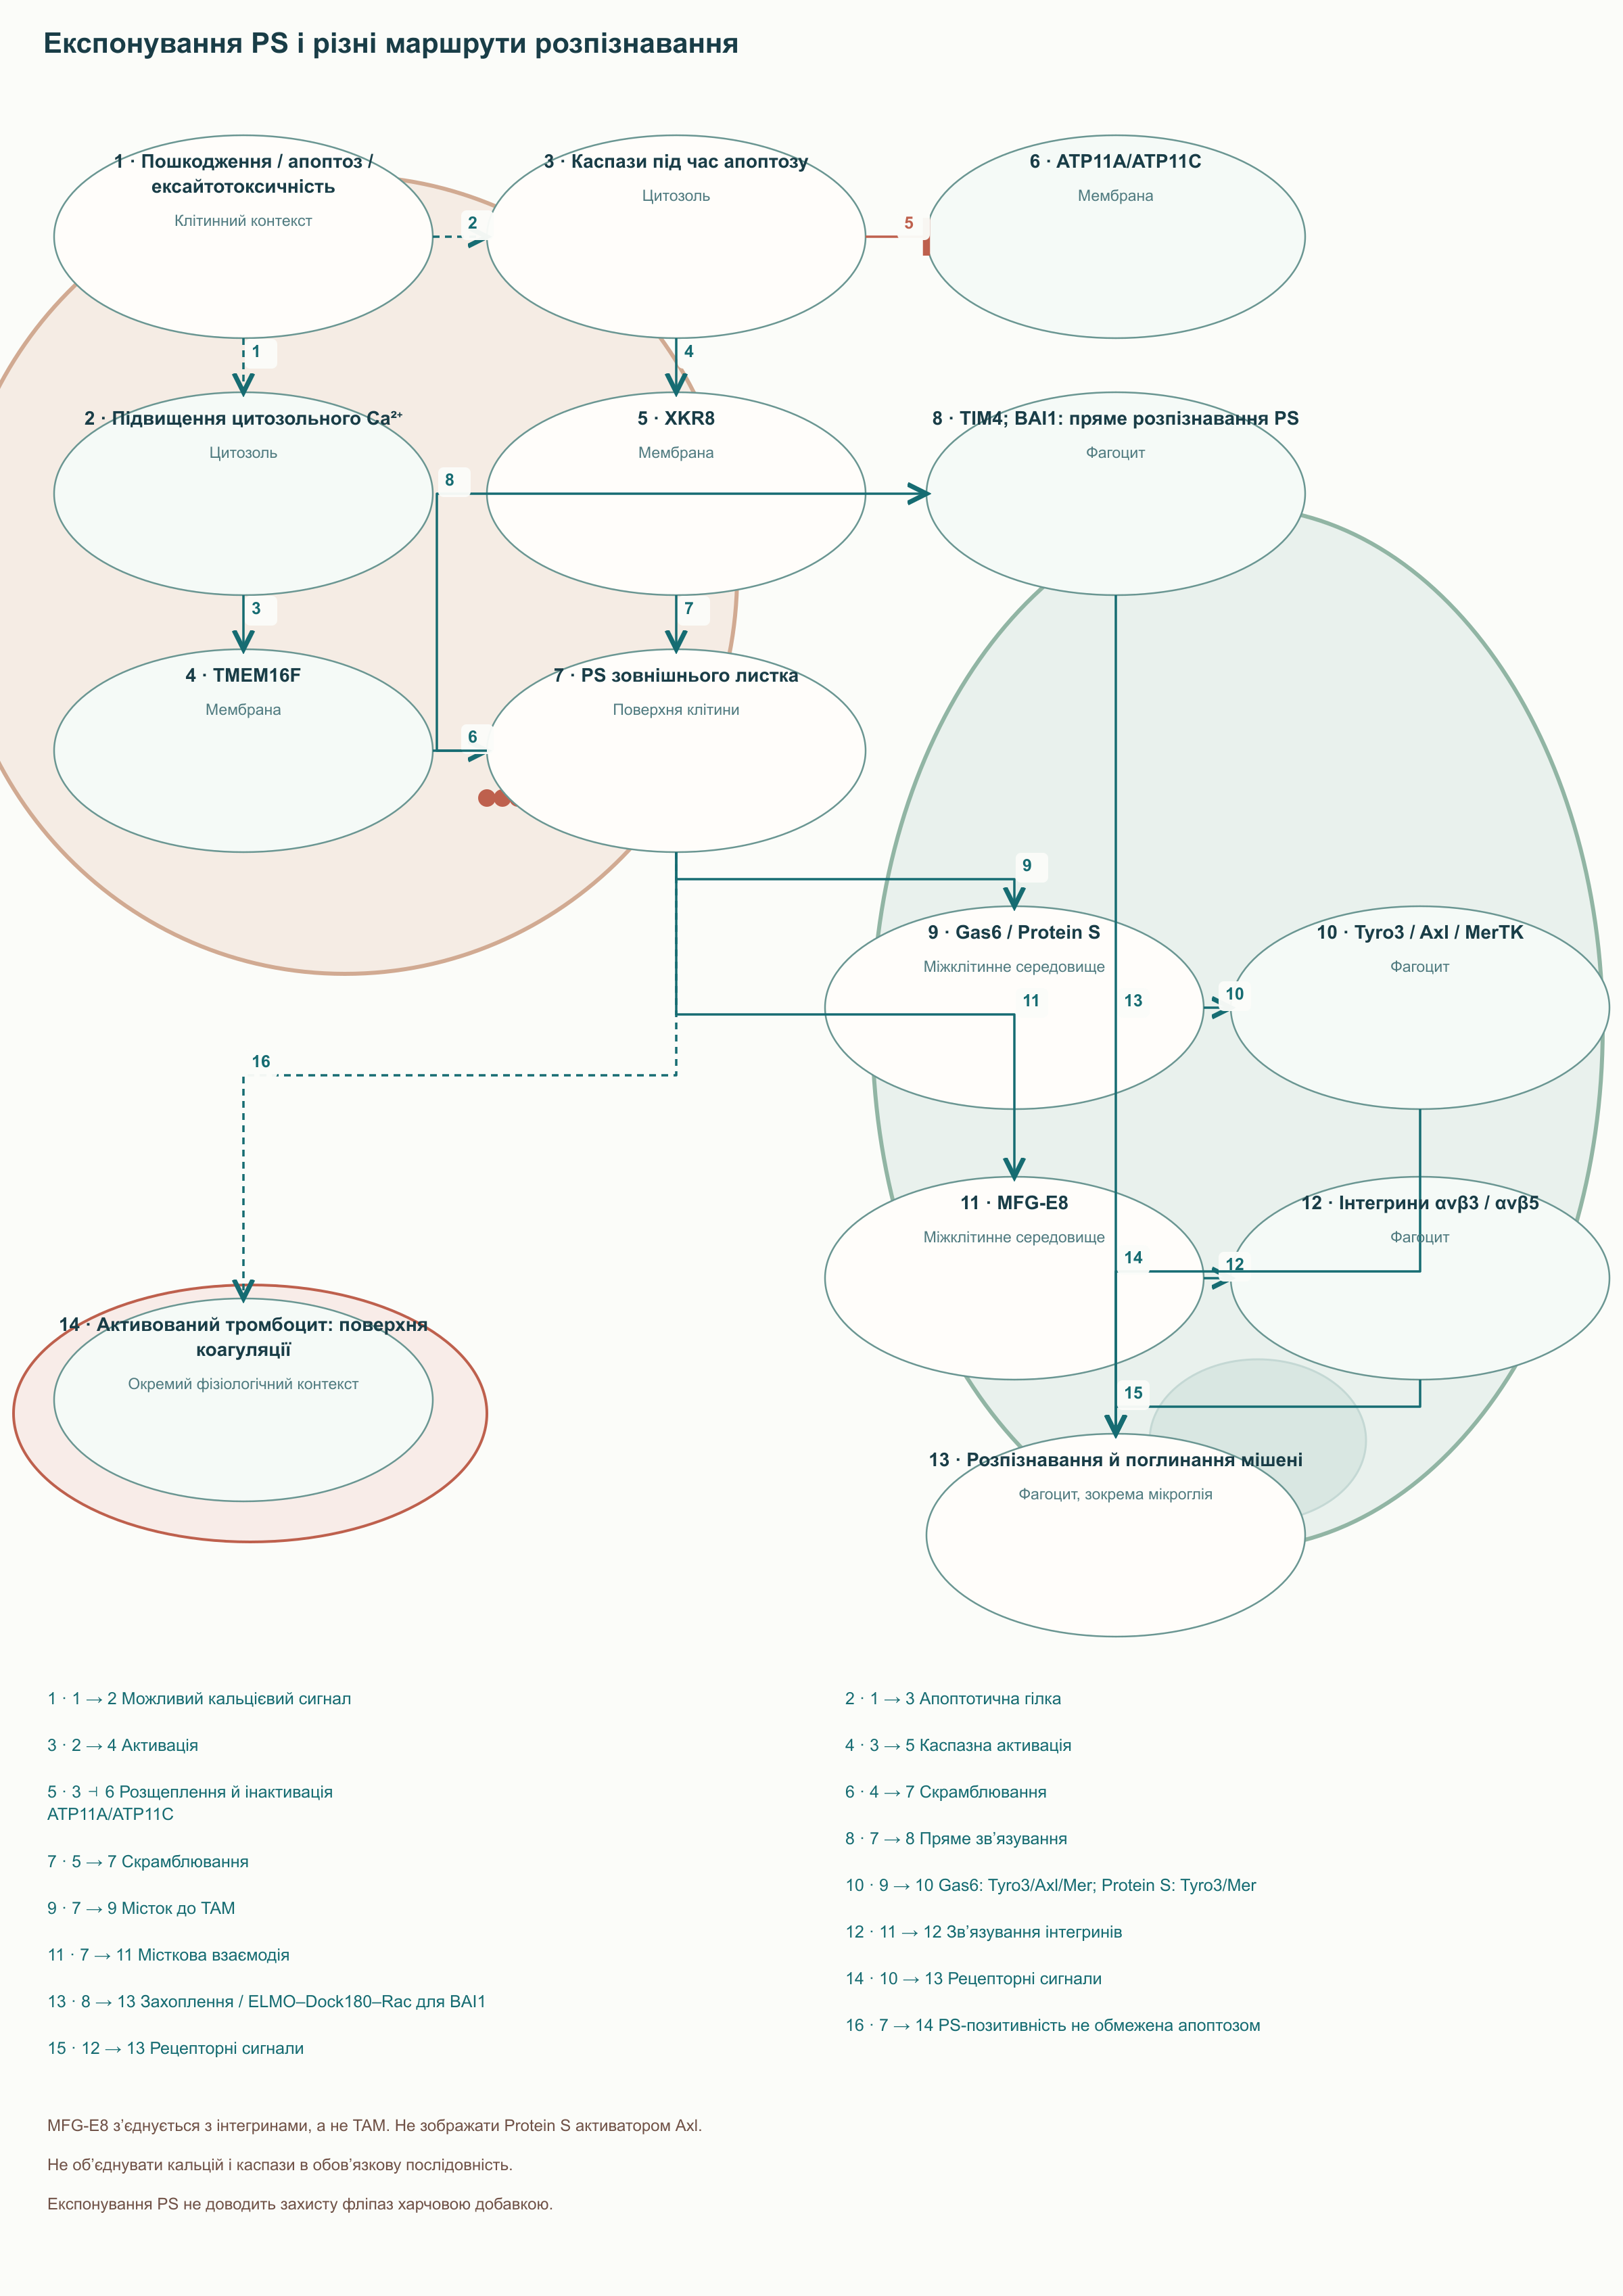
Шляхи рецепторного розпізнавання потрібно зображати окремо. TIM4 безпосередньо зв’язує PS і може утримувати мішень; BAI1 зв’язує PS та бере участь у поглинанні через ELMO/Dock180/Rac. Gas6 з’єднує PS-вмісну поверхню з рецепторами TAM, тоді як Protein S у досліджених системах активує Tyro3 і Mer, але не Axl; MFG-E8 утворює місток до інтегринів αvβ3 та αvβ5. Зведення всіх цих гілок до обов’язкового рецептора TAM змінює біологічний зміст схеми й особливо спотворює роль MFG-E8.
Видалення апоптотичних клітин зазвичай обмежує вихід їхнього вмісту в тканину, але запальний результат залежить від контексту й інших сигналів. Розпізнавання мембранних маркерів також бере участь у роботі мікроглії нервової системи, проте кожен контакт мікроглії з PS не можна прирівнювати до патологічної втрати синапсів. Звідси випливає конкретне клінічне обмеження: дослідження зовнішнього PS і фагоцитозу не доводять, що пероральна добавка зберігає нейрони, підтримуючи фліпази. Відповідні транспортні й рецепторні експерименти досліджували клітини, очищені білки або тварин, а не профілактику нейродегенерації у людей.
Протеїнкіназа C: спільна робота PS, кальцію та DAG
Класичні ізоформи PKC — α, βI, βII та γ — одночасно використовують кілька мембранних сигналів. За автоінгібування псевдосубстратна ділянка займає область каталізаторного центру й перешкоджає фосфорилюванню білків-мішеней. Ca²⁺ сприяє взаємодії домену C2 з PS-вмісною мембраною, а домен C1 зв’язує діацилгліцерол DAG. PIP₂ також бере участь у залученні до мембрани, тому достатня кількість PS є однією з умов активації, а не самостійною командою ввімкнути кіназу.
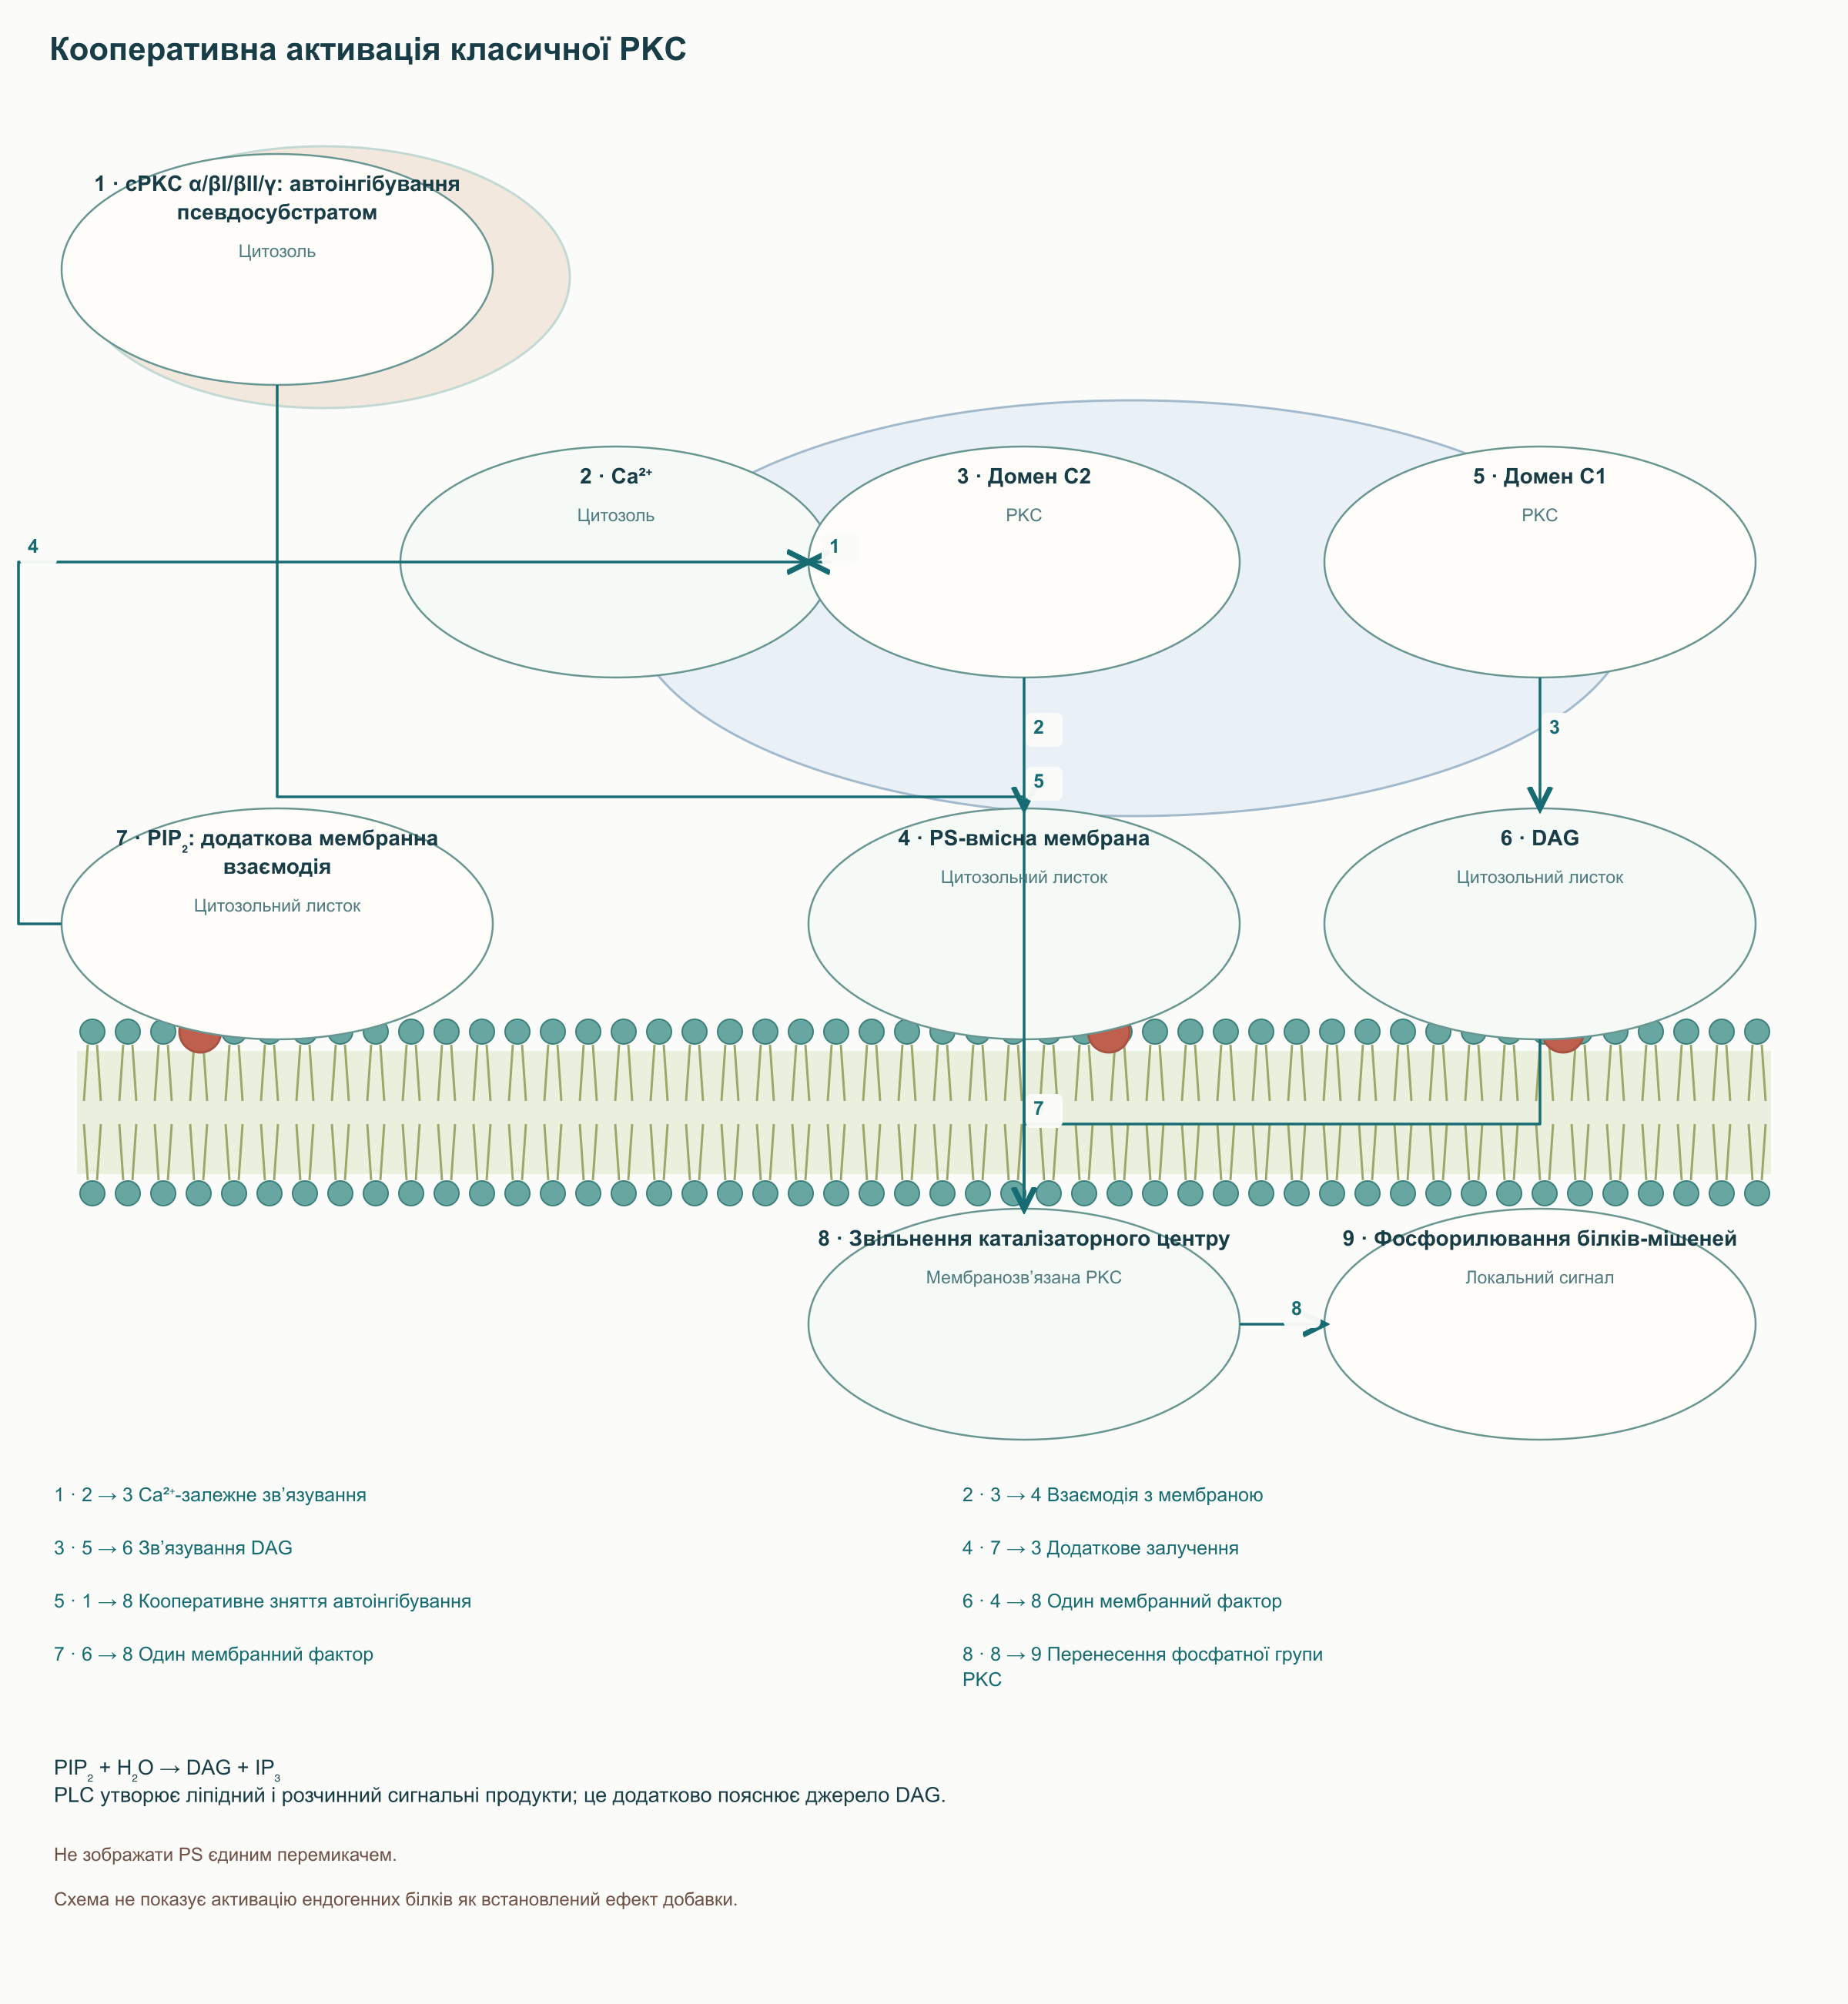
DAG утворюється, зокрема, коли фосфоліпаза C гідролізує PIP₂; одночасно виникає IP₃, який бере участь у мобілізації кальцію. Кооперативне зв’язування з мембраною допомагає звільнити каталізаторний центр PKC від псевдосубстрату й відкрити доступ до локальних мішеней. Така організація дає клітині змогу узгоджувати ліпідний склад із вхідним рецепторним сигналом та обмежувати відповідь певною ділянкою мембрани. Родини PKC мають різні регуляторні вимоги, тому схема класичної PKC не поширюється автоматично на всі ізоформи.
Структурні експерименти пояснюють значення PS для нормальних клітинних сигналів, але не визначають дозу добавки, що активує PKCγ у гіпокампі людини. Для такого висновку потрібно показати доставлення, зміну відповідного мембранного пулу та зміну активності кінази в потрібній тканині. Поліпшення одного тесту пам’яті не замінює жодного з цих вимірювань. Механізм створює біологічну правдоподібність, яку далі слід зіставляти з результатами конкретних випробувань за участю людей.
AMPA, NMDA та довготривала потенціація
Довготривала потенціація LTP означає стійке підвищення ефективності синаптичної передачі після певних протоколів стимуляції. У поширеній дослідницькій моделі деполяризація дозволяє NMDA-рецепторам проводити Ca²⁺, запускаючи локальні сигнальні реакції. Субодиниця GluA1 AMPA-рецептора має кілька регульованих ділянок: CaMKII та PKC фосфорилюють Ser831, тоді як Ser845 є мішенню PKA. Розміщення обох залишків під однією стрілкою «CaMKII/PKC» неправильно приписує ферменти й приховує окрему гілку cAMP–PKA.
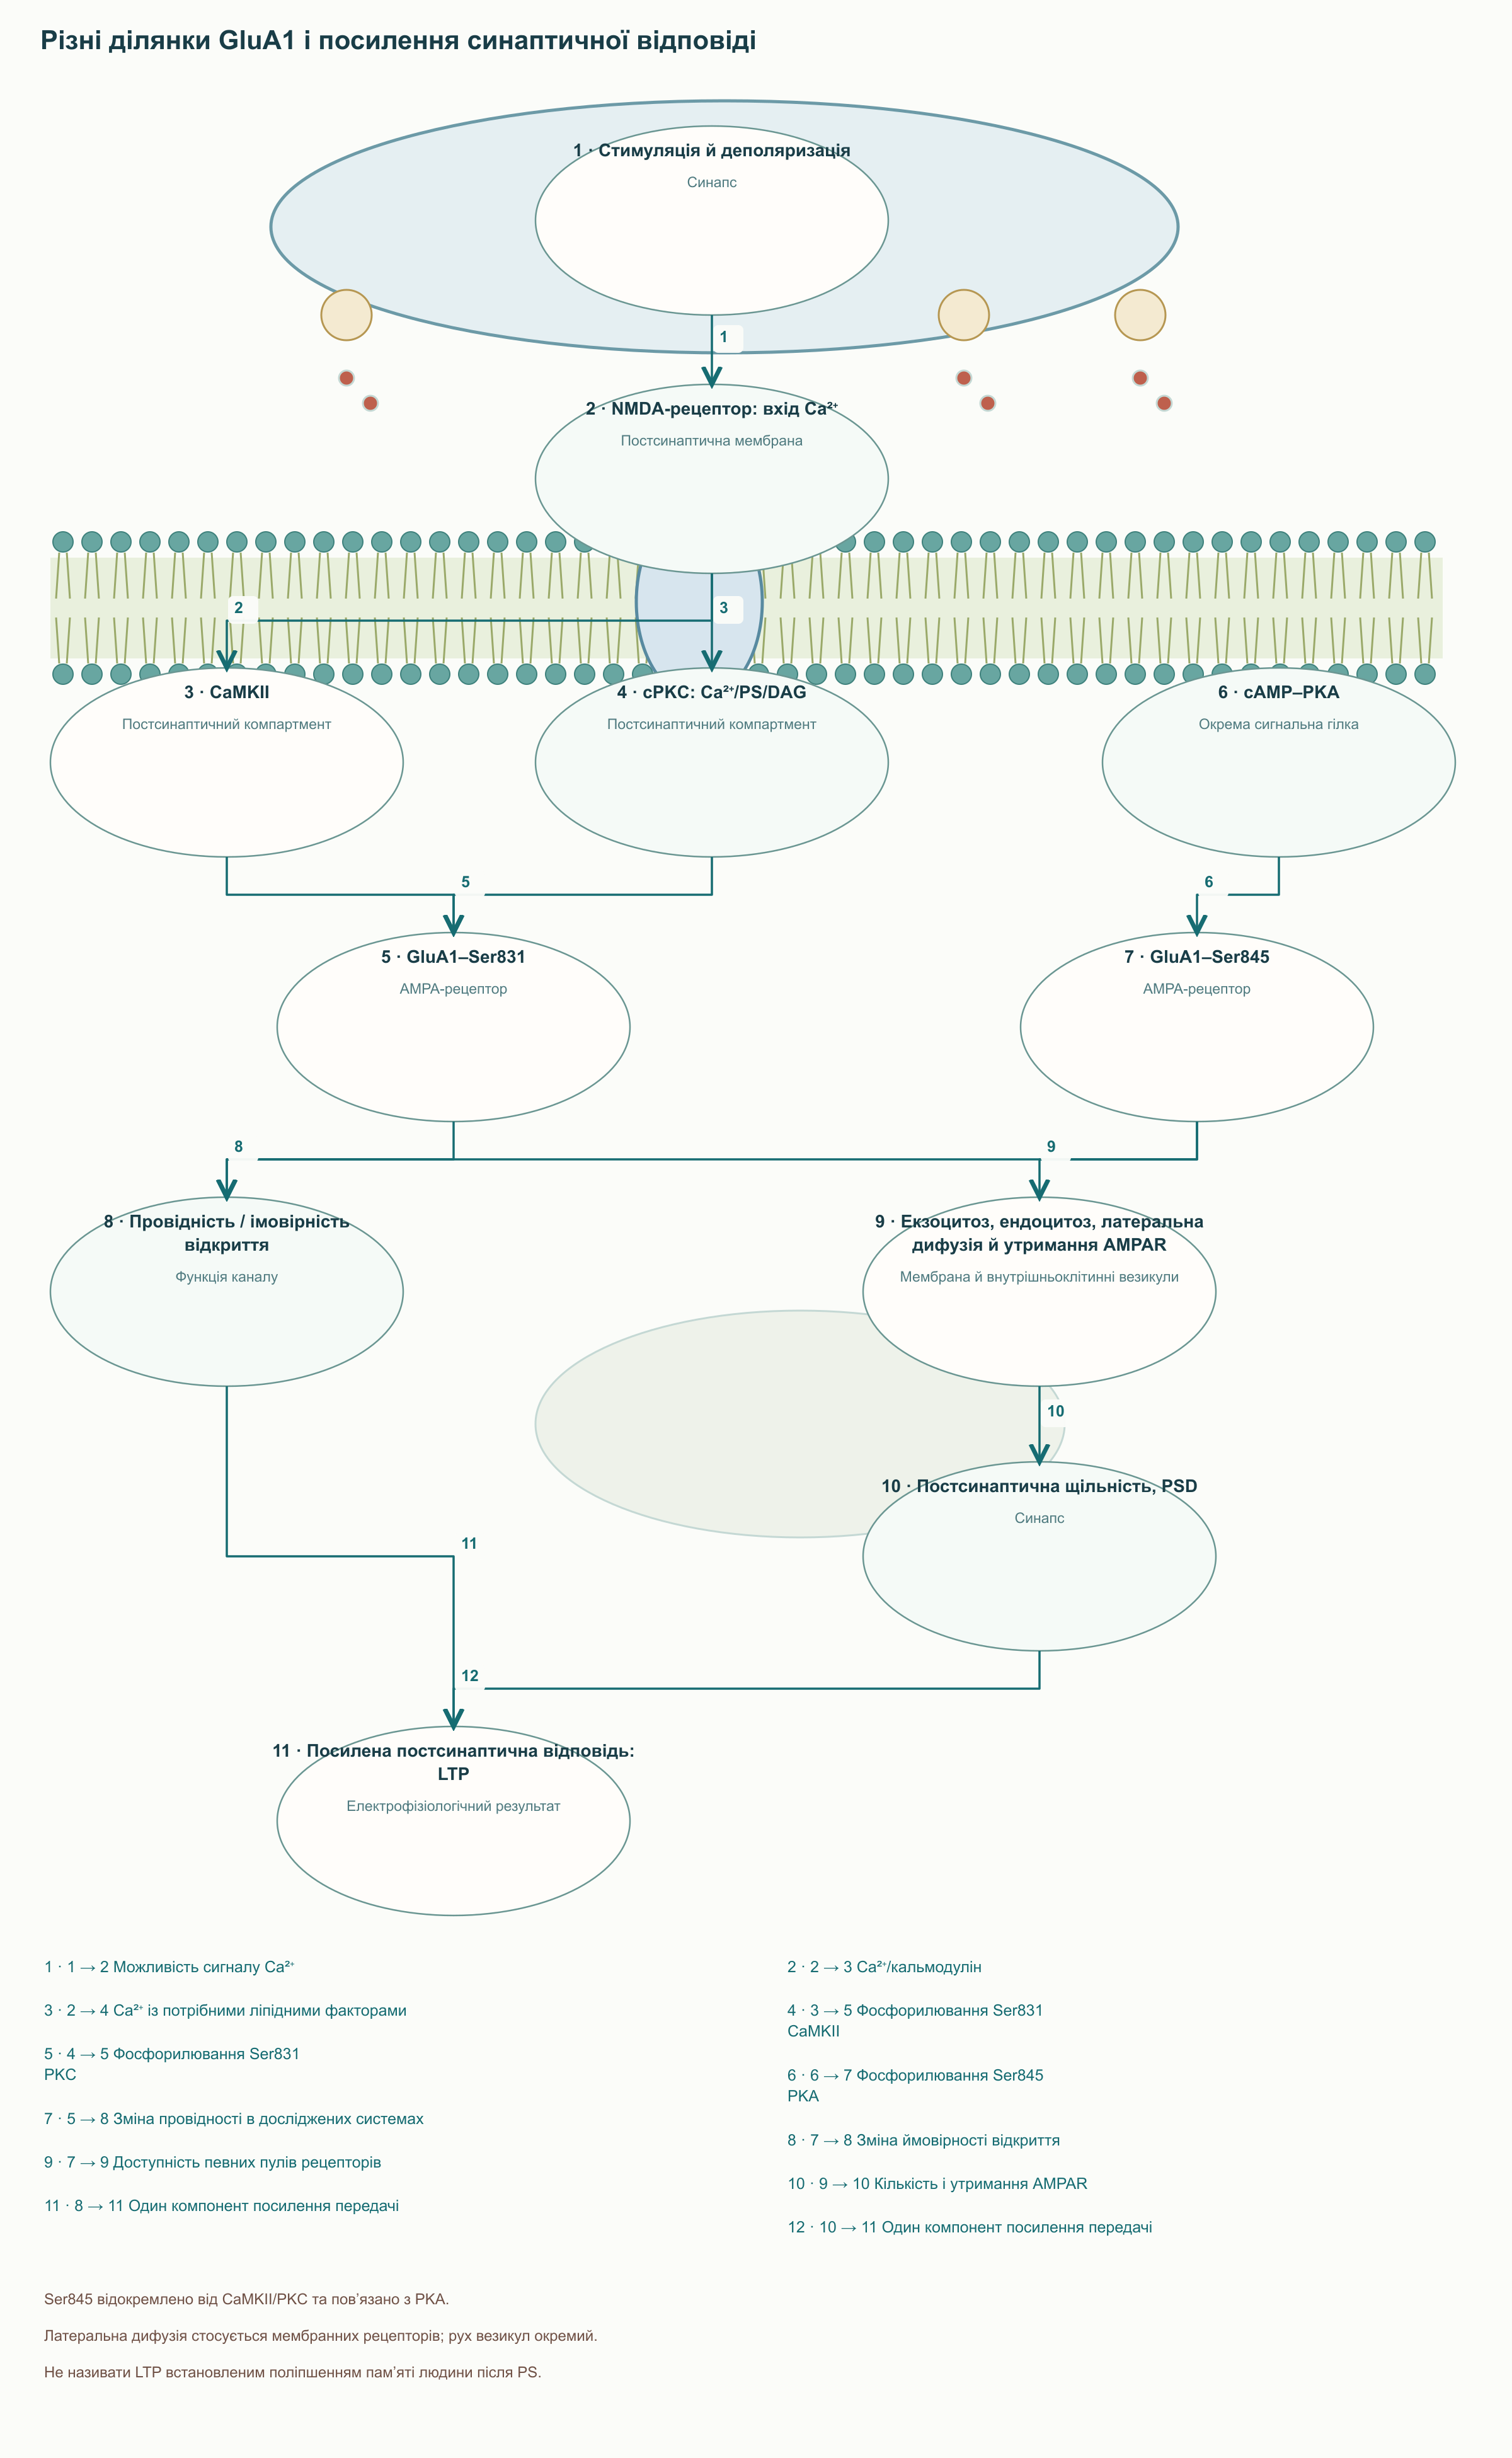
Фосфорилювання Ser831 може збільшувати провідність каналу, а Ser845 впливає на ймовірність відкриття та доступність певних пулів рецепторів. Кількість AMPA-рецепторів у постсинаптичній щільності змінюється через екзоцитоз, ендоцитоз, утримання білками та латеральне переміщення рецепторів у площині мембрани. Внутрішньоклітинні везикули рухаються інакше, тому «латеральна дифузія везикул» змішує різні етапи транспорту. Білки щільності, зокрема PSD-95, організовують рецепторні комплекси, але встановлена роль їхнього ліпідного оточення не доводить запобігання інтерналізації NMDA-рецепторів після приймання PS.
LTP — це електрофізіологічне явище, яке можна виміряти експериментально, тоді як пам’ять людини охоплює багато процесів і розподілених мереж. Зміна провідності каналу в клітинній системі не дозволяє прямо обчислити поліпшення навчання або кількість збережених синапсів у пацієнта. Так само тест запам’ятовування слів не визначає каскад, відповідальний за його результат. Ці рівні аналізу корисно пов’язувати, зберігаючи виміряний результат кожного дослідження й не підмінюючи клінічний результат назвою молекулярного шляху.
Іонні градієнти та видалення глутамату
Синаптична передача залежить не лише від рецепторів, а й від відновлення іонних градієнтів та видалення нейромедіатора. За один цикл із витрачанням ATP Na⁺/K⁺-АТФаза виводить три Na⁺ і вводить два K⁺; підтримуваний нею натрієвий градієнт забезпечує багато вторинно-активних транспортерів. EAAT2, пов’язаний переважно з астроцитарним видаленням глутамату, переносить глутамат усередину разом із трьома Na⁺ та одним H⁺, виводячи один K⁺. Ця система енергетично сполучена: за тяжкого порушення градієнтів транспорт нейромедіатора вже не працює так, як у фізіологічних умовах.
PS може впливати на мембранні білки через їхнє ліпідне оточення, але універсального підвищення активності Na⁺/K⁺-АТФази на 40–60% після приймання добавки не встановлено. Для порівняння потрібні тканина, мембранний препарат, вихідний ліпідний склад та умови вимірювання; дані очищеного ферменту не визначають концентрацію PS у мозку людини. Транспортні співвідношення можна записати так: ATP + 3Na⁺ᵢ + 2K⁺ₒ → ADP + Pᵢ + 3Na⁺ₒ + 2K⁺ᵢ; глутаматₒ + 3Na⁺ₒ + H⁺ₒ + K⁺ᵢ → глутаматᵢ + 3Na⁺ᵢ + H⁺ᵢ + K⁺ₒ. Тут «ᵢ» та «ₒ» означають усередині й зовні мембрани, а не різні хімічні форми іона.
Akt, Raf і транскрипційна регуляція
PS також бере участь у сигналах виживання клітини, але конкретні білки зв’язуються з мембранами по-різному. У клітинних і реконструйованих системах PS разом із PIP₃ сприяє залученню Akt та конформаційним змінам, які дозволяють фосфорилювання Thr308 і Ser473. Канонічний каскад пов’язує ці етапи відповідно з PDK1 та mTORC2; PS не замінює сигнали PI3K і утворення PIP₃. Тому фрази «PS зменшує стеричні перешкоди» недостатньо: вона не визначає ліпідів і регуляторів, потрібних для спостережуваної відповіді.
Домени Raf також потрібно розрізняти: RBD зв’язує активований Ras, а багатий на цистеїн CRD взаємодіє з мембранним оточенням, зокрема PS. Подальша активація Raf–MEK–ERK потребує додаткових регуляторних подій, і її не можна вивести лише з негативно зарядженої ліпідної головки. Залежно від стимулу ERK регулює CREB через нижчерозташовані кінази RSK або MSK, а не обов’язково діє безпосередньо. Фосфорилювання CREB Ser133 є частиною транскрипційної регуляції, проте зміна експресії конкретного гена потребує відповідного клітинного контексту й інших регуляторів.
BDNF, Bcl-2, Bad і каспаза-9 перебувають на різних рівнях регуляції пластичності та апоптозу. Сигнали Akt можуть впливати на проапоптотичні білки, а CREB бере участь у транскрипційних програмах, але це не утворює гарантованого ланцюга «PS → CREB → BDNF → збережений нейрон». У моделях DHA зміни пулу PS пов’язували з Akt і стійкістю нейрональних клітин до апоптозу; такі експерименти дають причинну інформацію всередині моделі. Для перенесення висновку на профілактику хвороби Альцгеймера або підвищення BDNF у людини потрібні окремі клінічні докази.
HPA-вісь: як виникає та обмежується стресова відповідь
Гіпоталамо-гіпофізарно-надниркова вісь HPA координує ендокринний компонент стресової відповіді. Парвоцелюлярні нейрони паравентрикулярного ядра гіпоталамуса PVN виділяють CRH та аргінін-вазопресин у портальну кров гіпофіза. CRH діє через CRHR1 та Gαs–аденілатциклазу–cAMP, а вазопресин посилює відповідь через рецептори V1b; кортикотрофи виділяють ACTH, утворений із POMC. Далі ACTH активує MC2R у корі надниркових залоз і пов’язані процеси стероїдогенезу.
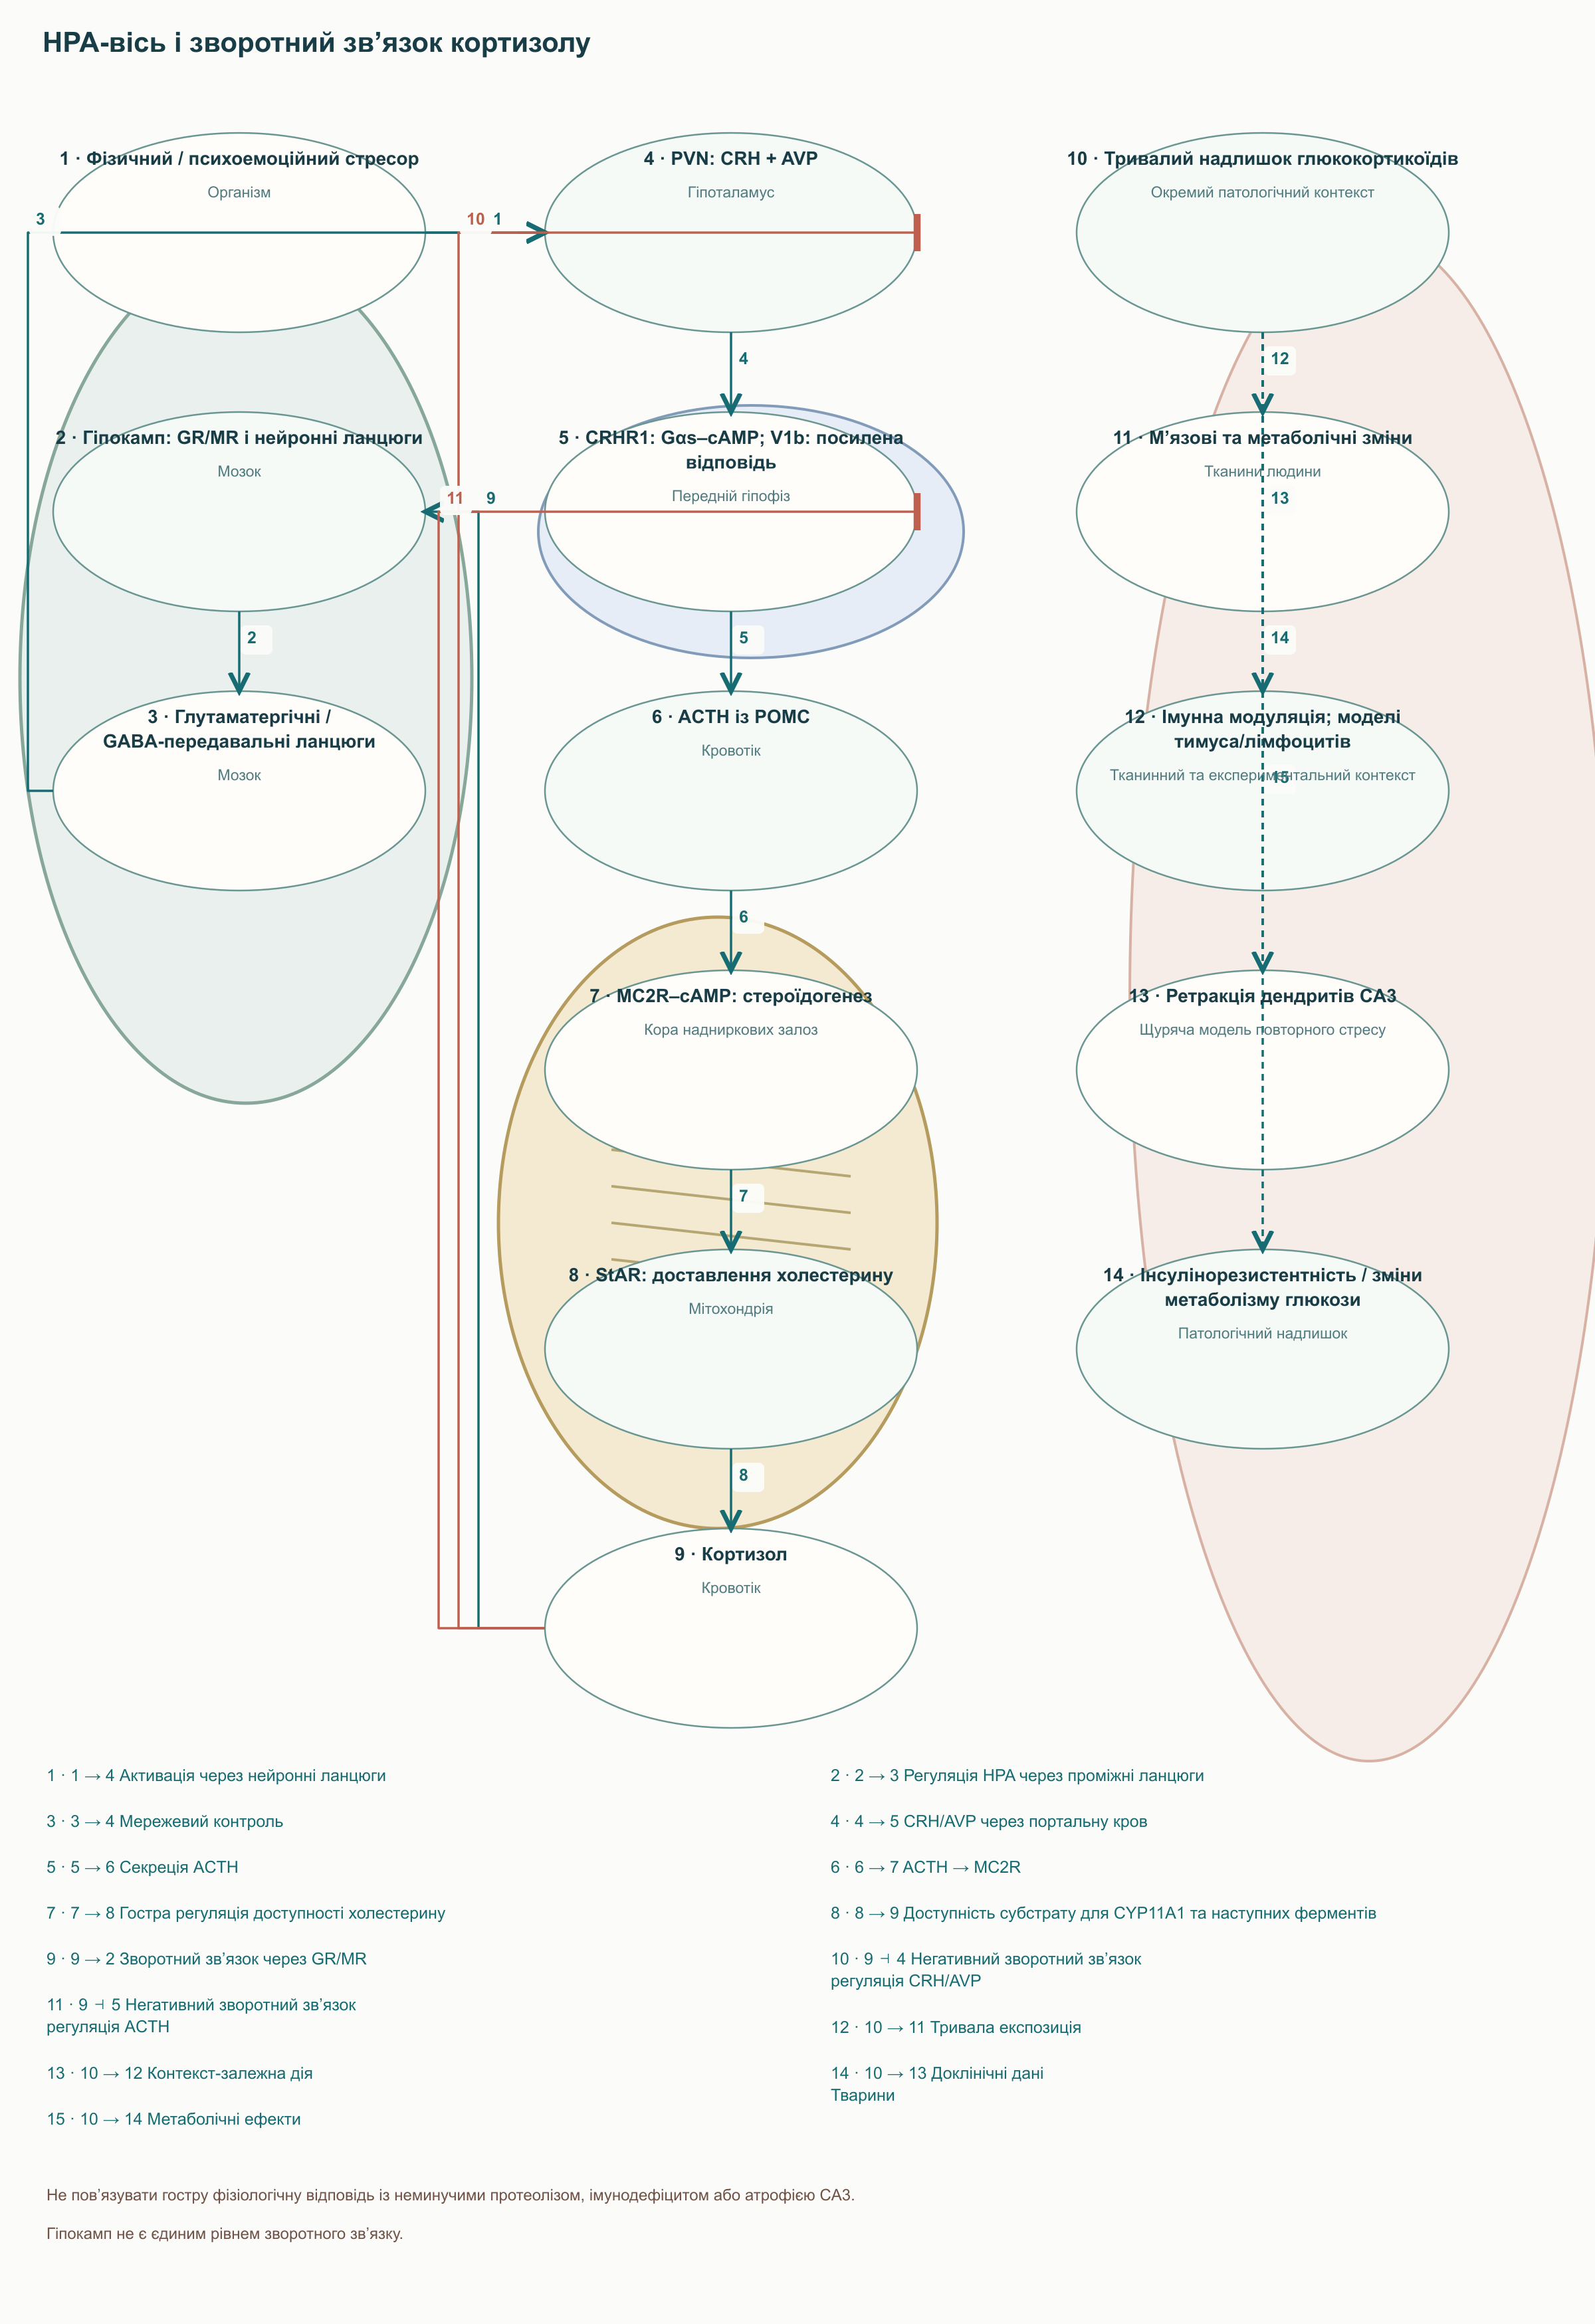
StAR робить холестерин доступним для стероїдогенезу, доставляючи його до внутрішньої мітохондріальної мембрани. Це транспортно-регуляторний білок, а не фермент перетворення холестерину на кортизол: у першому ферментативному перетворенні бере участь CYP11A1, далі працюють інші ферменти каскаду, зокрема CYP11B1. Кортизол забезпечує зворотний зв’язок на кількох рівнях, включно з гіпофізом, гіпоталамусом і структурами мозку; функції GR та MR відрізняються залежно від тканини й умов. Гіпокамп регулює HPA через нейронні ланцюги, тому його не можна зображати єдиним прямим вимикачем PVN.
Гостре підвищення кортизолу допомагає мобілізувати субстрати й адаптуватися до навантаження, тоді як тривалий патологічний надлишок глюкокортикоїдів може супроводжуватися м’язовою слабкістю, метаболічними та імунними змінами. У дослідженнях щурів повторний стрес укорочував апікальні дендрити нейронів CA3; цей важливий доклінічний результат не доводить загибелі гіпокампа після звичайних тренувань людини. Дані про нейрогенез зубчастої звивини та ексайтотоксичність також потребують зазначення конкретних моделей. Синдром перетренованості не діагностують за одним значенням кортизолу або співвідношенням тестостерон/кортизол, і його причини не можна звести до одного гормону.
Де може діяти добавка: межі гіпотези щодо GR
У деяких випробуваннях PS або комбінацій за участю людей вимірювали нижчу відповідь ACTH і кортизолу на фізичне навантаження. Зміни обох гормонів дозволяють обговорювати регуляцію HPA, але не визначають місця дії в гіпокампі, PVN або надниркових залозах. Сам GR переважно внутрішньоклітинний, а його функціональне дозрівання залежить від шаперонів Hsp70/Hsp90 та пов’язаних білків. Сучасні структурні дослідження показують складний цикл збирання й активації, який не можна пояснити лише «плинністю мембрани».
У наведених випробуваннях людей немає прямих вимірювань ланцюга «пероральний PS → змінена мембрана гіпокампа → дисоціація Hsp90 → підвищення чутливості GR → зниження CRH». Так само можлива холінергічна або катехоламінергічна модуляція в тваринних моделях не доводить посилення синтезу ацетилхоліну та квантового вивільнення у людини. Твердження про пригнічення CRH під час перфузії зрізу гіпоталамуса потребує конкретного первинного дослідження з концентраціями й умовами, а не гормонального RCT замість нього. На практиці точним є опис досліджуваної зміни стресової відповіді, тоді як її молекулярна локалізація залишається відкритим питанням.
Джерела сировини: що означає однакова головка PS
В історичних клінічних дослідженнях часто використовували фосфатидилсерин із кори головного мозку великої рогатої худоби BC-PS. Сучасні соєві та соняшникові інгредієнти отримують із рослинних фосфоліпідів; їхній ацильний склад залежить від вихідного лецитину та технології оброблення. Матеріали PS з омега-3 можуть містити DHA-зв’язані молекулярні види й інші ліпіди, тому PS-DHA не гарантує єдиної стандартизованої структури всіх продуктів. Інгредієнти слід порівнювати за фактичним вмістом PS, жирнокислотним складом, супутніми речовинами та випробуваннями саме цієї форми.
| Параметр | BC-PS | Соєвий PS | Соняшниковий PS | PS з омега-3 |
|---|---|---|---|---|
| Ацильні ланцюги sn-1 | Залежать від мозкової фракції; можливі насичені ланцюги | Залежать від лецитину й процесу | Залежать від лецитину й процесу | Залежать від субстрату та ремоделювання |
| Ацильні ланцюги sn-2 | Нервова тканина може бути збагачена DHA та ARA | Переважно профіль рослинного субстрату | Профіль конкретного соняшникового субстрату | DHA/EPA та молекулярні види потребують специфікації |
| Омега-3 | Залежить від вихідної сировини | Не слід вважати джерелом значущої дози DHA | Не слід вважати джерелом значущої дози DHA | Кількість зазначають окремо від маси PS |
| Виробництво | Екстракція тваринної нервової тканини | Зазвичай ферментативна трансфосфатидиляція | Зазвичай ферментативна трансфосфатидиляція | DHA-вмісні фосфоліпіди або окремі етапи модифікації |
| Алергени | Оцінюють для продукту | Важливі залишкові білки сої | Відсутність сої не виключає інших алергенів | Важливі походження й залишкові білки |
| Безпека | Особливі вимоги до матеріалів ВРХ | Визначається якістю й умовами застосування | Визначається якістю й умовами застосування | Визначається якістю й умовами застосування |
Частку лінолевої кислоти 50–65%, олеїнової 60–75% та DHA не менш як 20–30% не можна приписувати кожному інгредієнту відповідної категорії. Для таких порівнянь потрібні аналітичні дані конкретної партії та чіткий знаменник: усі жирні кислоти, ланцюги sn-2 або види PS. Соняшникове походження та маркування Non-GMO так само не доводять гіпоалергенності. Історичний результат BC-PS залишається результатом BC-PS, доки клінічну порівнянність нового складу не показано безпосередньо.
BSE та ферментативне виробництво
Перехід від тваринної мозкової сировини до рослинних фосфоліпідів частково пов’язаний із ризиками BSE та обмеженнями щодо матеріалів ВРХ. BSE пов’язана з варіантною хворобою Крейтцфельдта–Якоба у людини, vCJD: CDC вказує на сильні епідеміологічні й лабораторні докази причинності після контакту із забрудненим матеріалом. Пріон PrPˢᶜ є патологічною конформацією білка, стійкою до багатьох звичайних способів оброблення, але «абсолютна стійкість до будь-якого автоклавування» — неточність: для потенційно забруднених інструментів існують спеціальні процедури. Регулювання США забороняє певні матеріали високого ризику в їжі та добавках, зокрема мозок ВРХ визначеної вікової категорії. Це конкретні регуляторні обмеження, а не доказ світової заборони всіх форм BC-PS від середини 1990-х років.
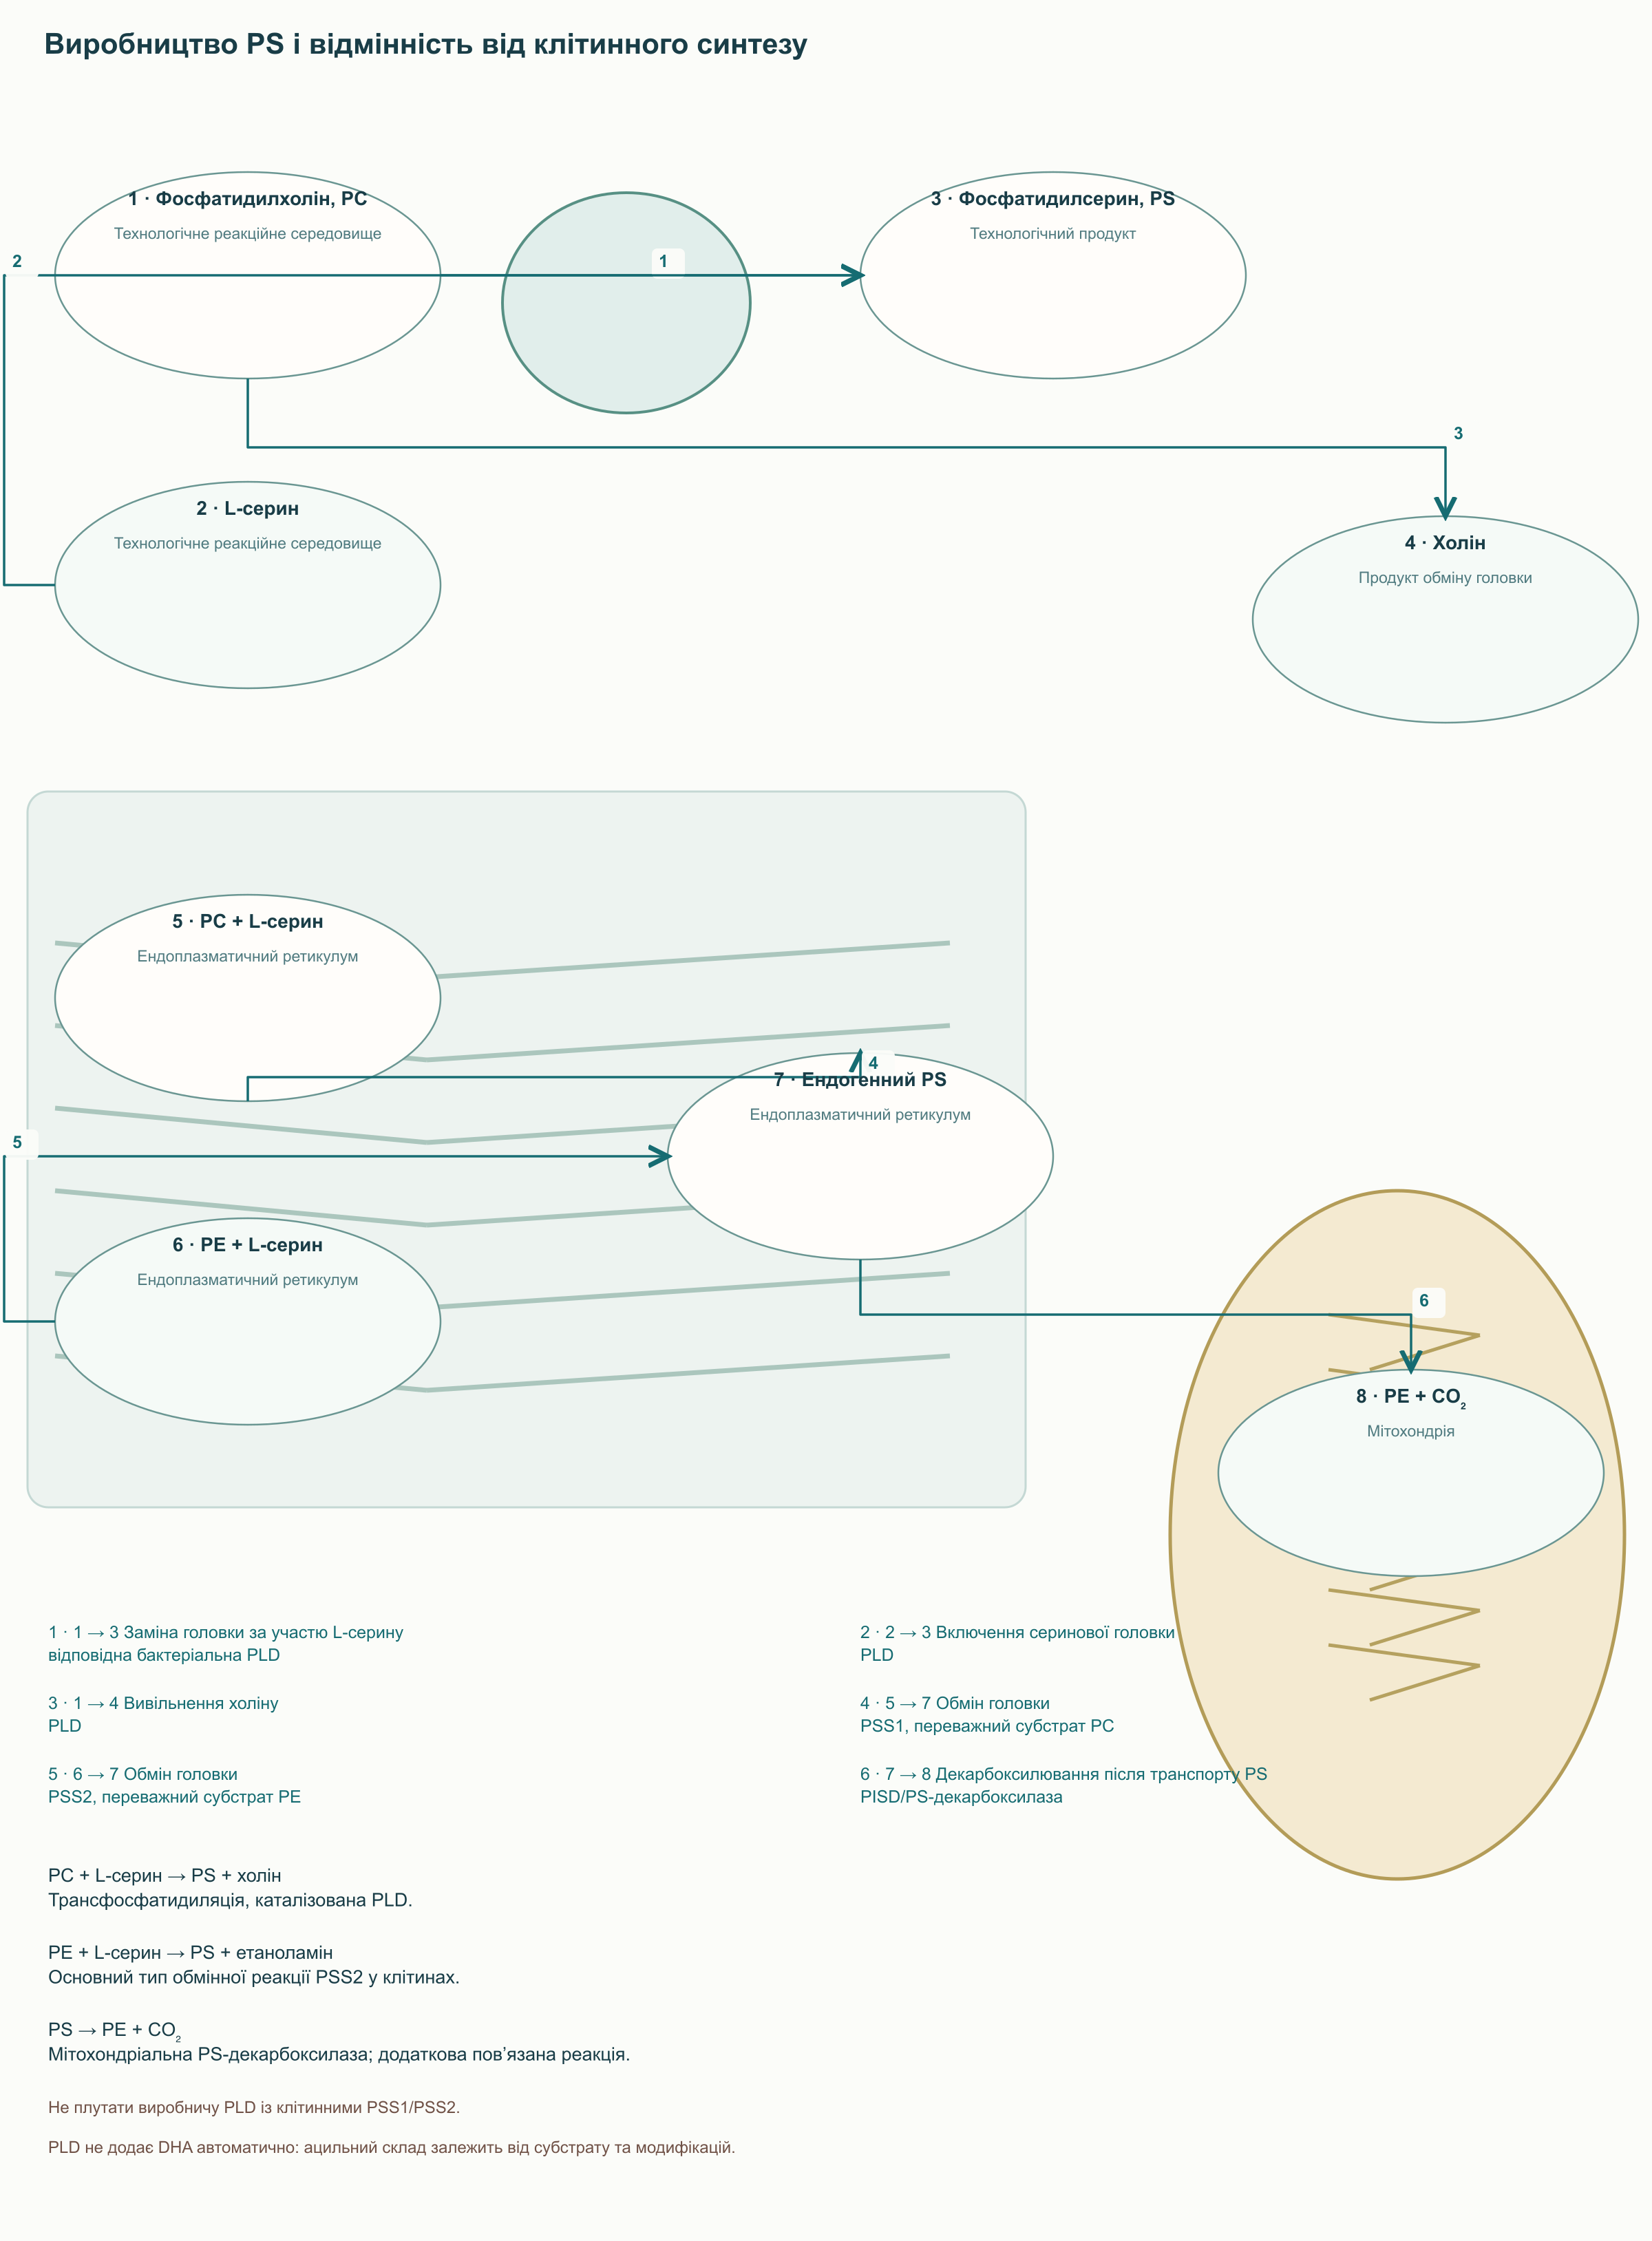
Технологічна трансфосфатидиляція замінює головку PC серином: PC + L-серин → PS + холін; реакцію каталізує відповідна фосфоліпаза D, PLD. Мікробний продуцент, середовище та співвідношення субстратів впливають на вихід цільового продукту й конкурентний гідроліз. У різних дослідженнях використовували різні PLD, тому один штам Streptomyces не можна оголошувати універсальним промисловим джерелом ферменту. Саме перенесення головки зберігає ацильні ланцюги субстрату; отже, для отримання DHA-вмісного PS потрібні відповідні фосфоліпіди або окреме ремоделювання, а не просте додавання риб’ячого жиру до будь-якої реакції.
Всмоктування, цикл Ландса та гематоенцефалічний бар’єр
Після приймання ліпіди проходять кишкове перетравлення та метаболічні перетворення; серед обговорюваних шляхів PS є гідроліз, лізоформи та перетворення на інші фосфоліпіди. В експериментах на щурах визначали кишковий метаболізм введених лізофосфоліпідів, а після внутрішньовенних ліпосом із міченим PS — декарбоксилювання й гідролітичний розпад. Шляхи введення та моделі потрібно називати прямо: внутрішньовенна ліпосома не відтворює перетравлення капсули. Радіоактивна мітка в органі без хімічної ідентифікації показує розподіл мітки, але не обов’язково збереження вихідної молекули PS.
Цикл Ландса охоплює деацилювання фосфоліпіду та повторне приєднання жирної кислоти ацилтрансферазою, що дозволяє ремоделювати мембранні ліпідні види. Проте його існування не доводить повного маршруту рослинного PS від кишківника через ендотелій до нейрональної мембрани людини. MFSD2A переносить довголанцюгові жирні кислоти у складі лізофосфатидилхоліну, зокрема LPC-DHA; із цього не випливає транспорт лізо-PS. Субстрати мають різні головки, а вибірковість клітинного транспорту не визначається лише подібністю назв.
Нервова тканина може синтезувати й ремоделювати власний PS, тому відсутність доведеного транспорту незміненої молекули не виключає будь-якого можливого ефекту добавки. Однак вона не дозволяє заявляти про повну ноотропну або ендокринну біоеквівалентність BC-PS, соєвого, соняшникового та PS-DHA. Навіть позитивний результат одного рослинного препарату не доводить однакової ефективності інших складів. Професійний вибір спирається на порівняльний клінічний дизайн і виміряні результати, а не лише на спільну серинову головку та передбачувану долю ацильних ланцюгів.
Фізичне навантаження: гормони й реальні вимірювання
Ранні дослідження Monteleone та колег за участю людей допомогли сформувати гіпотезу зміненої ендокринної відповіді на навантаження. У 1990 році вісім здорових чоловіків отримували внутрішньовенний BC-PS перед велоергометрією; цей шлях принципово відрізняється від приймання добавки. У роботі 1992 року дев’ять здорових чоловіків приймали 800 мг BC-PS щодня протягом десяти днів: відповіді ACTH і кортизолу були нижчими, а підвищення гормону росту та пролактину істотно не змінювалися. Ці невеликі експерименти показують гормональний сигнал за конкретного протоколу, а не запобігання перетренованості або збереження м’язової маси.
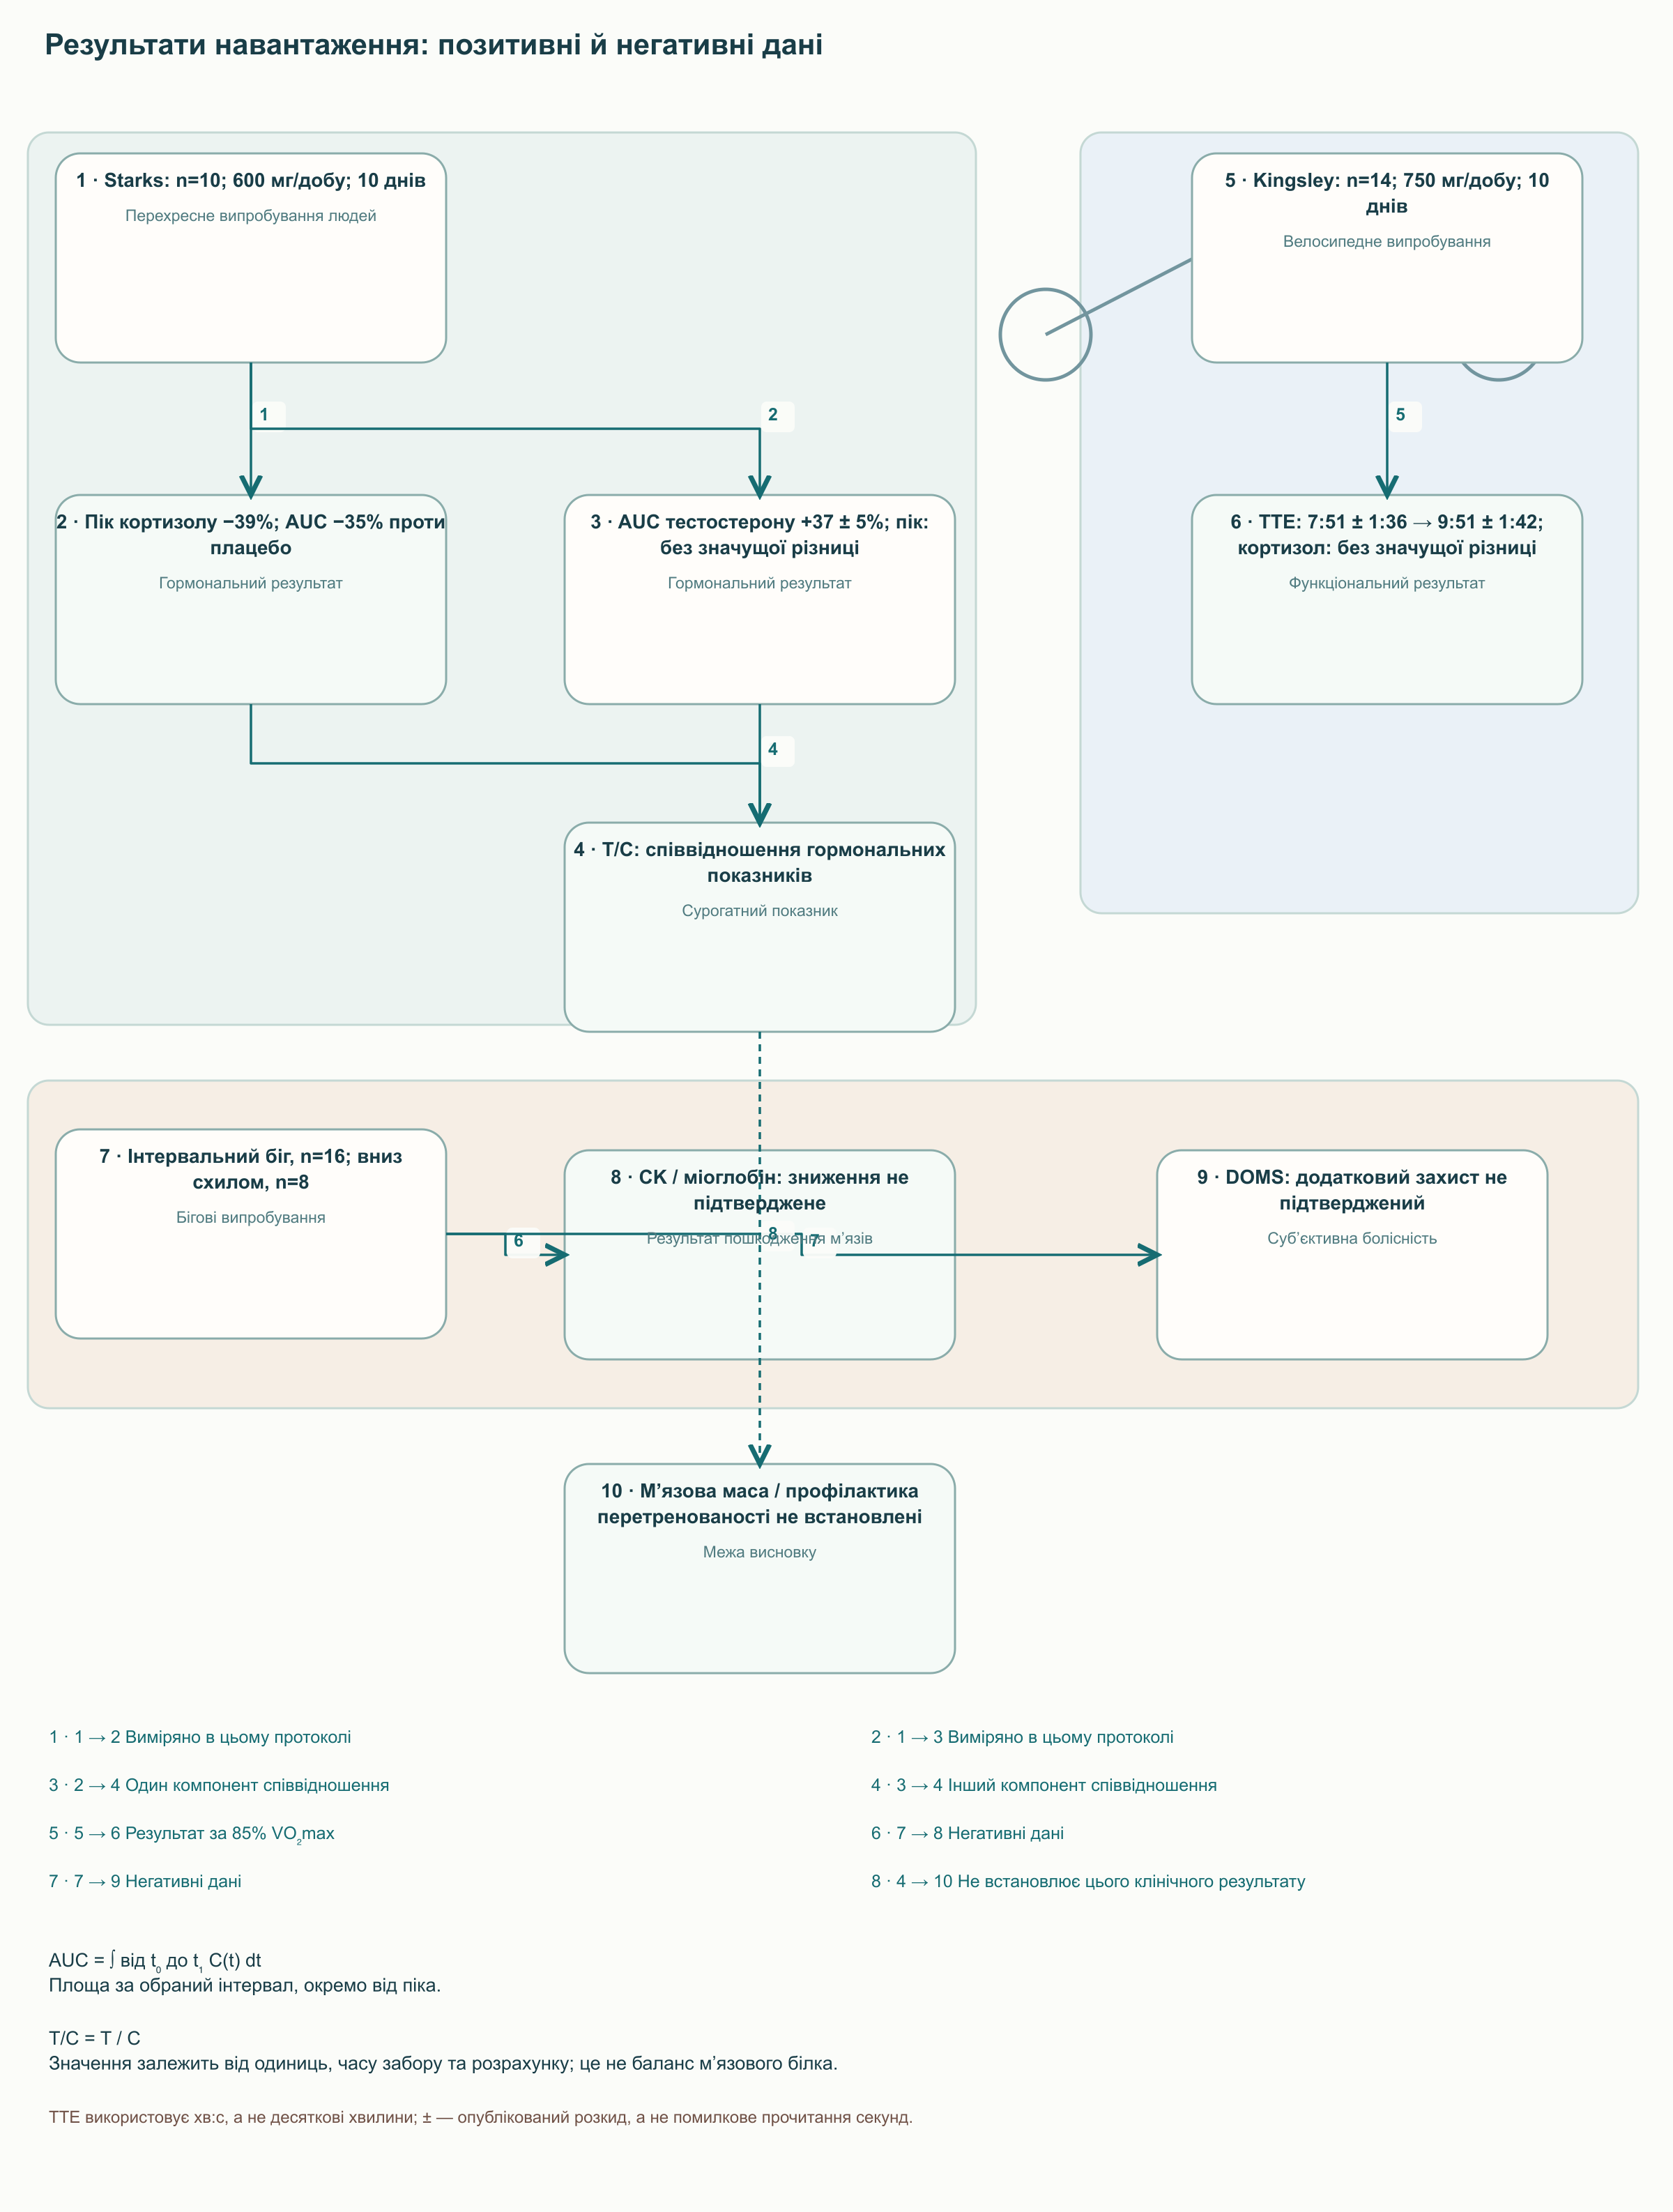
У 1998 році Fahey та Pearl досліджували 800 мг соєвого PS на добу під час двотижневих періодів інтенсивних силових тренувань у 11 чоловіків за перехресним дизайном. В опублікованому авторському резюме описано падіння кортизолу після тренування всередині періоду PS із 15,6 ± 1,7 до 10,0 ± 0,9 мкг/дл; це порівняння не можна автоматично подавати як кількісну міжгрупову різницю. Суб’єктивне самопочуття й болісність оцінювали за десятибальними шкалами, тому приписувати цій роботі опитувальник POMS неправильно. Мала вибірка й експериментально збільшене тренувальне навантаження також не дозволяють описувати її як лікування встановленого клінічного синдрому перетренованості.
У перехресному випробуванні Starks та колег 2008 року десять здорових чоловіків приймали 600 мг соєвого PS на добу десять днів перед велонавантаженням. Порівняно з плацебо пік кортизолу був нижчим на 39%, а площа під кривою концентрації AUC — на 35%; це окремі показники. AUC тестостерону збільшилася на 37 ± 5%, але для піка тестостерону статистично значущої різниці не отримано, а показники гормону росту й лактату істотно не змінювалися. Дослідження не вимірювало синтез м’язового білка, зміни безжирової маси або частоту перетренованості, тому його ендокринний результат не слід називати доведеним антикатаболічним лікуванням.
AUC відображає сукупну експозицію за обраний інтервал: AUC = ∫ від t₀ до t₁ C(t) dt, де C(t) — концентрація гормону в часі. Нижчий пік може поєднуватися з іншим часом відновлення, тому відсотки для піка й площі не взаємозамінні. T/C також залежить від одиниць, часу забору та змін обох гормонів, а не безпосередньо відображає баланс синтезу й розпаду м’язового білка. Для професійного тлумачення потрібні разом дизайн навантаження, спосіб розрахунку та незалежний функціональний результат.
Витривалість, пошкодження м’язів і точність рухів
У випробуванні Kingsley та колег 2006 року 14 фізично активних чоловіків приймали 750 мг соєвого PS або плацебо протягом десяти днів. Після послідовних десятихвилинних етапів за 45%, 55% і 65% VO₂max вони працювали за 85% VO₂max до виснаження. У групі PS тривалість останнього етапу збільшилася із 7 хвилин 51 секунди ± 1 хвилина 36 секунд до 9 хвилин 51 секунди ± 1 хвилина 42 секунди; у плацебо змінилася з 8:09 ± 0:54 до 8:02 ± 0:54. Взаємодія «група–час» була значущою, p = 0,005, але кортизол, окиснення субстратів і настрій істотно не змінилися: експеримент не встановив гормональної причини поліпшення.
У 2005 році ті самі дослідники вивчали 16 футболістів після інтервального бігу з подальшим виснажувальним етапом, застосовуючи 750 мг PS на добу десять днів. Кортизол, болісність, креатинкіназа, міоглобін і показники перекисного окиснення ліпідів підвищувалися подібно до плацебо; різниця зміни часу до виснаження залишилася тенденцією, p = 0,084. В окремому перехресному випробуванні 2006 року вісім чоловіків бігли вниз схилом −16,5% приблизно 51 хвилину, приймаючи 750 мг PS сім днів до та два дні після навантаження. Додаткового захисту від DOMS, пошкодження м’язів, запальних або окиснювальних показників не виявлено, тому загальна схема PS зі зниженням CK та швидшим відновленням не відповідає цій серії робіт.
Jäger та колеги в 2007 році досліджували інше завдання: 20 чоловіків-гольфістів із гандикапом 15–40 отримували 200 мг PS на добу в харчовому батончику або плацебо 42 дні. Середня кількість добрих польотів м’яча з 20 ударів змінилася з 8,3 ± 3,5 до 10,1 ± 3,0 у групі PS та з 7,8 ± 2,4 до 7,9 ± 3,6 у плацебо. Сприйманий стрес демонстрував тенденцію, p = 0,07, а середня частота серцевих скорочень істотно не змінилася. Це обмежений результат точності конкретного завдання; перенесення на дрібну моторику всіх людей, підсумкові турнірні бали або стабілізацію пульсу виходить за межі виміряного.
Вікові скарги на пам’ять та історичні роботи з BC-PS
Вікове погіршення пам’яті AAMI було дослідницькою категорією, яку не можна автоматично прирівнювати до хвороби Альцгеймера або сучасного діагнозу легкого когнітивного порушення. У роботі Crook та колег 1991 року 149 людей з AAMI отримували 100 мг BC-PS тричі на добу або плацебо 12 тижнів. Автори повідомили про поліпшення окремих показників навчання й пам’яті, особливо в частини учасників із гіршими початковими результатами. Цей сигнал варто зберегти, але він не показує зниження ймовірності деменції та не встановлює ефективності сучасного соняшникового інгредієнта.
Багатоцентрова робота Cenacchi та колег 1993 року охопила 494 людей віком 65–93 роки з помірним або вираженим когнітивним зниженням у 23 геріатричних і загальномедичних центрах. BC-PS призначали по 300 мг щодня шість місяців; період завершили 425 учасників, а доступність даних окремих тестів відрізнялася. Вимірювали Plutchik Geriatric Rating Scale і Buschke Selective Reminding Test, тому результати стосуються цих шкал пам’яті та поведінки. Автори знайшли переваги в показниках пам’яті й факторі замкненості/апатії, але фактор повсякденної активності ADL не мав значущої міжгрупової різниці.
Розмір цієї роботи важливий, але результати слід читати разом із вибуттям учасників, історичними діагностичними критеріями та тваринним походженням препарату. Твердження про краще самообслуговування кожного пацієнта стирає негативний результат ADL і розширює фактичну область вимірювання. За деменції потрібно розрізняти зміни тестів, стійке повсякденне функціонування та уповільнення самої хвороби. Ані шестимісячний тестовий ефект, ані його молекулярне пояснення не доводять модифікації нейродегенеративного процесу.
Соєвий PS: позитивні підгрупи й негативне випробування
Робота Jorissen та колег 2001 року необхідна для збалансованої оцінки рослинної форми. До неї увійшли 120 людей старше 57 років з AAMI, які отримували 300 мг або 600 мг соєвого PS чи плацебо щодня 12 тижнів із подальшим періодом без лікування. Істотного впливу на досліджені когнітивні показники не виявлено. Отже, діапазон 100–300 мг не можна подавати як доведений універсальний ноотропний протокол, а збільшення до 600 мг — як гарантований спосіб поліпшення пам’яті.
У 2010 році Kato-Kataoka та колеги включили 78 японських учасників віком 50–69 років зі скаргами на пам’ять; дослідження завершили 73. Вони отримували 100 мг або 300 мг соєвого PS чи плацебо щодня шість місяців, потім їх спостерігали ще три місяці. Використовували HDS-R, MMSE та Rivermead Behavioural Memory Test, а не Wechsler Memory Scale; загальний аналіз HDS-R показав поліпшення всіх груп без переконливої загальної переваги PS. У підгрупі з низькими вихідними результатами автори знайшли переваги окремих показників відстроченого відтворення, зокрема під час подальшого спостереження.
Підгруповий ефект допомагає сформувати гіпотезу про можливих респондентів, але потребує відтворення в проспективно запланованому дослідженні. Повторне тестування може покращувати результати через знайомство із завданням, тому міжгрупове порівняння важливіше за сам факт поліпшення. Ця робота не вирішила всіх сумнівів щодо біоеквівалентності й не показала підвищення щільності синапсів. Для практики корисніше назвати точну популяцію та тест, ніж замінити їх загальною обіцянкою «відновлення когнітивних функцій».
PS з омега-3 та дослідження при РДУГ
У 2010 році Vakhapova та колеги рандомізували 157 літніх людей без деменції зі скаргами на пам’ять до PS з омега-3 або плацебо на 15 тижнів. Добовий склад містив 300 мг PS і 79 мг DHA/EPA; період завершили 131 учасник, а аналіз ефективності додатково залежав від дотримання протоколу. Перевагу виявили для негайного відтворення слів, p = 0,043, та в пошукових аналізах деяких підгруп. Результат стосується цього багатокомпонентного препарату й окремого тесту, а не будь-якої форми PS або всіх когнітивних функцій.
Публікація 2014 року описувала відкрите продовження: 122 учасники отримували 100 мг PS і 26 мг DHA/EPA щодня ще 15 тижнів. Плацебо-контрольована фаза та відкрите продовження відрізняються дозою й дизайном; повторне тестування та відсутність контрольної групи обмежують причинне тлумачення. Продовження дозволяє обговорювати спостережувані зміни, а не «накопичення нейропластичного плато» або незалежне підтвердження вихідного результату. Його слід враховувати як окрему роботу відкритого продовження, а не друге рандомізоване випробування 300 мг.
Hirayama та колеги вивчали соєвий PS у дітей 4–14 років із РДУГ, які раніше не отримували відповідного медикаментозного лікування. Із 40 рандомізованих дітей період завершили 36: 19 приймали 200 мг PS щодня, а 17 — плацебо, протягом двох місяців. Публікація повідомила про переваги деяких симптомних показників і окремих помилок GO/NO-GO; робоча пам’ять та середній час відповіді істотно не поліпшилися. Невелика, переважно чоловіча вибірка, аналіз тих, хто завершив дослідження, та множинні результати обмежують екстраполяцію, а участь авторів у дистрибуції PS посилює потребу незалежного відтворення.
РДУГ потребує оцінювання симптомів і порушень функціонування в кількох середовищах, а не лише результату комп’ютерного завдання. NICE розглядає спеціалізовану діагностику, навчання й підтримку сім’ї, зміни середовища та медикаменти за показаннями. Випробування PS не робить добавку еквівалентом цих підходів і не створює загального дитячого протоколу дозування. Для фахівців воно залишається невеликим випробуванням, яке можна обговорити із сім’єю, зберігаючи і позитивні, і негативні результати.
Соціальний стрес: три випробування з різними складами
Трірський соціальний стрес-тест TSST поєднує виступ перед комісією, яка оцінює, з усним рахунком під соціальним тиском. Він стандартизує навантаження та дозволяє порівнювати часові відповіді ACTH і кортизолу, але не відтворює всі форми хронічного стресу, безсоння або тривожного розладу. Кортизол слини й сироватки, пульс і суб’єктивний стрес — окремі результати, які можуть змінюватися незалежно. Серія Hellhammer 2004, 2012 та 2014 років охоплює окремі випробування, а не метааналіз зі спільною оцінкою ефекту.
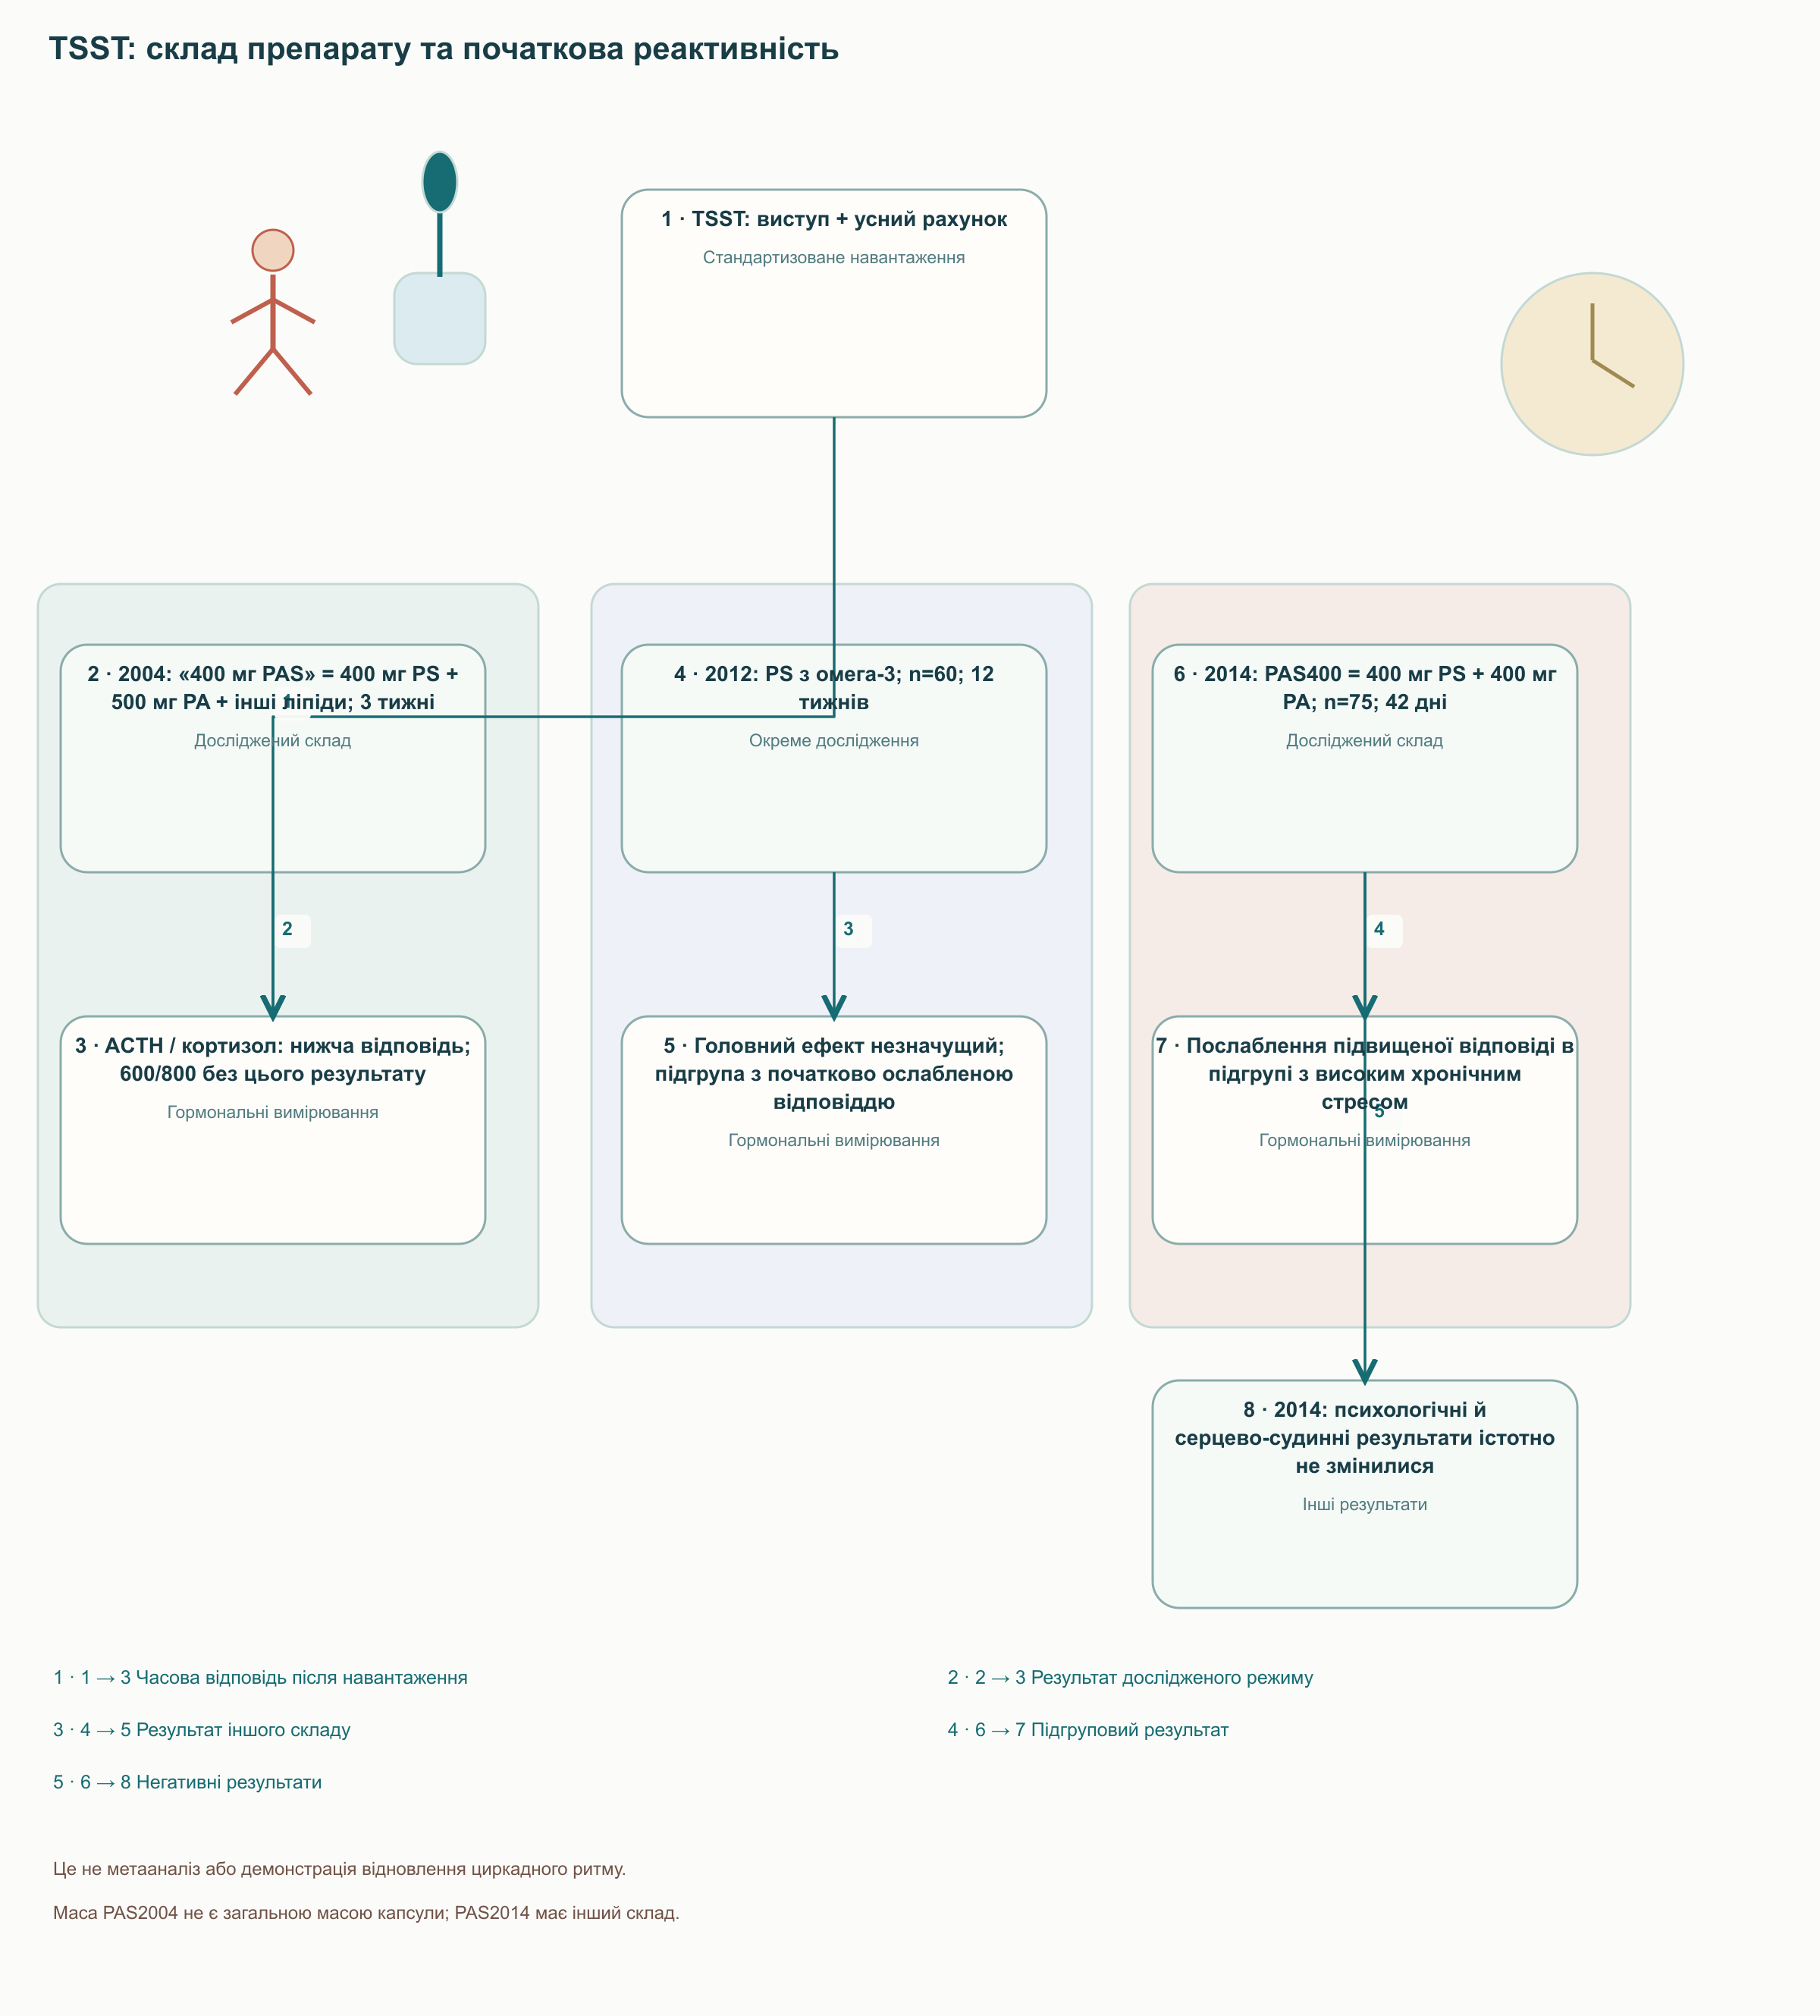
У 2004 році 80 здорових дорослих розподілили до плацебо або трьох режимів дозування PAS перед TSST після трьох тижнів приймання. Авторське позначення «100 мг PAS» відповідало капсулі зі 100 мг PS, 125 мг PA, 270 мг інших фосфоліпідів і 5 мг кремнезему: отже, «400 мг PAS» містили 400 мг PS і 500 мг PA, а не 200 + 200 мг. Режим 400 мг послаблював гормональну відповідь, тоді як 600 і 800 мг не дали такого результату. Відсутність монотонної залежності від дози не встановлює універсального рецепторного «терапевтичного вікна» й не робить ці дози еквівалентними чистому PS.
У випробуванні Hellhammer 2014 року 75 здорових чоловіків приймали інший PAS 42 дні: PAS400 містив 400 мг PS і 400 мг PA щодня, PAS200 — по 200 мг кожного компонента. Вищий режим знижував відповіді ACTH і кортизолу в підгрупі з високим хронічним стресом та підвищеною реактивністю, але нижчий режим і підгрупа з низьким стресом не показали відповідного ефекту. Психологічні відповіді та серцево-судинні показники істотно не змінилися. «Виснаження надниркових залоз», відновлення циркадного ритму й кортизолова відповідь пробудження не досліджувалися, тому екстраполяція на ці стани невиправдана.
Дослідження омега-3 у PS 2012 року охопило 60 здорових чоловіків 30–60 років, які не курили, і тривало 12 тижнів. Значущого загального головного ефекту не знайдено; у підгрупі з високим хронічним стресом автори описали зміни початково ослабленої кортизолової відповіді. Це відрізняється від гіперреактивності у випробуванні PAS 2014 року й не підтримує твердження «PS завжди знижує кортизол». За подібними назвами комплексів не можна відновлювати всі кількості інгредієнтів з інших робіт: обговорення потребує складу та опису саме вихідного дослідження.
Робота Benton та колег 2001 року дає ще один приклад залежності від популяції. Приймання 300 мг PS щодня протягом місяця пов’язували з кращим настроєм і сприйманим стресом у молодих дорослих із вищим вихідним нейротизмом. Це результат підгрупи та самооцінювання, а не доказ однакової дії на гормони або частоту серцевих скорочень. Порівняння ендокринних, психологічних і функціональних результатів запобігає перетворенню різних знахідок на загальну обіцянку «нормалізації HPA».
Дози та тривалість: від дослідницького режиму до рішення
У когнітивних дослідженнях використовували 100–600 мг PS на добу, часто від 12 тижнів до шести місяців. Проте негативне випробування Jorissen і неоднозначні результати Kato-Kataoka показують, що належність до цього діапазону не гарантує результату. Масу чистого PS потрібно відрізняти від маси лецитину або всього комплексу: 500 мг суміші не означає 500 мг PS. Поділ добової дози траплявся у випробуваннях, але не встановлює універсально кращого розкладу або мінімальної кількості харчового жиру.
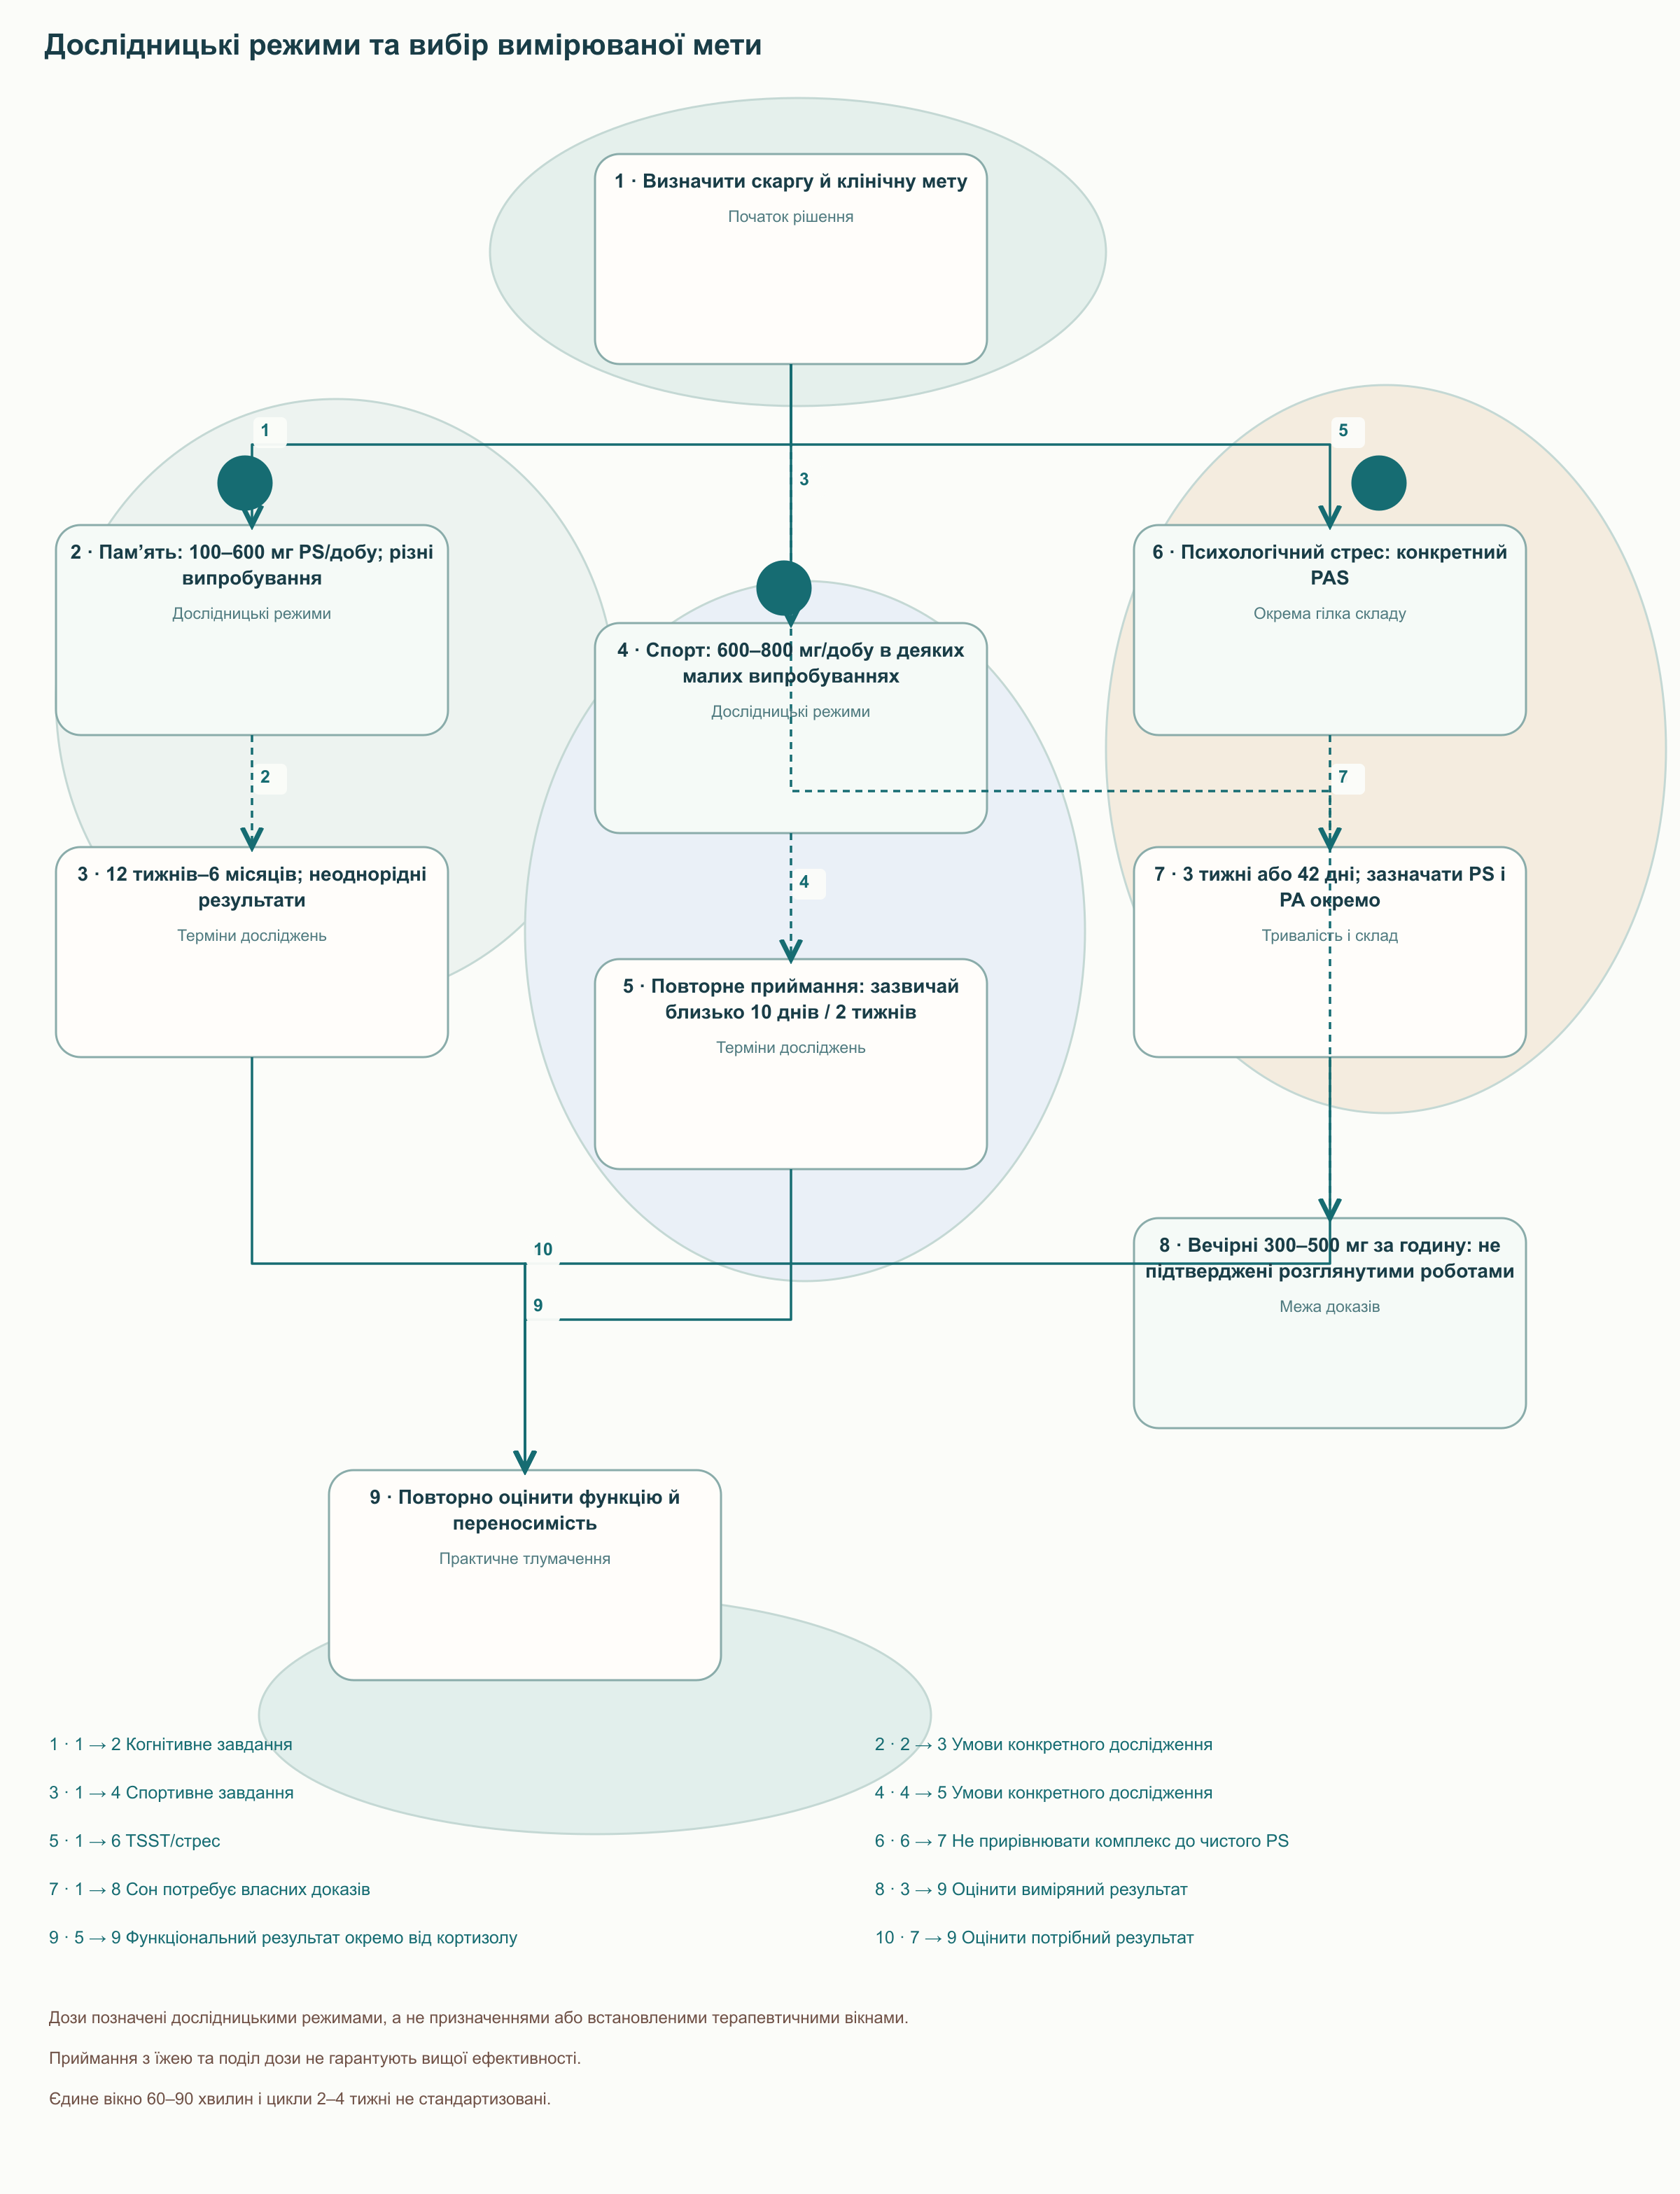
Обговорюючи добавку з людиною, яка повідомляє про проблеми пам’яті, спершу визначають, що змінюється: забування подій, концентрація, сон, настрій чи повсякденна самостійність. Далі обирають вимірювану мету й узгоджують термін повторного оцінювання з урахуванням супутнього лікування та змін навантаження. Самі серійні тести можуть давати ефект навчання, тому результати потрібно зіставляти з функціонуванням і спостереженнями близьких. Якщо скарги прогресують або порушують самостійність, дослідження їхньої причини важливіше за збільшення дози добавки.
У спортивних випробуваннях зазвичай давали 600–800 мг щодня кілька послідовних днів, а не лише раз перед подією. Вони не дають переконливого порівняльного обґрунтування універсального вікна «за 60–90 хвилин» або циклів «два–чотири тижні з перервою». У невеликому кінетичному експерименті Moré та колег вісім здорових добровольців одноразово прийняли 500 мг PS і 400 мг PA; частка PS серед фосфоліпідів сироватки досягла піка приблизно через 90 хвилин. Це не вимірювало портальних «ліпопептидних комплексів», мозкової експозиції або оптимального часу для поліпшення спортивного результату.
Сон, втома й оцінювання кортизолу
Розглянуті джерела не доводять, що 300–500 мг PS за годину до сну покращують глибокий NREM-сон або лікують порушений циркадний профіль кортизолу. «Втомлений, але збуджений» і нав’язливий потік думок описують переживання людини, а не гормональний діагноз. Пізній сон, змінний графік, тривога, ліки й багато інших станів можуть впливати на скарги та лабораторні показники. За такими описами не можна призначати «блокування гіпоталамічного імпульсу», а ефективність PS для сну потребує випробувань із відповідними результатами.
Пізньовечірній кортизол слини має конкретне діагностичне застосування, відмінне від самостійного пошуку причини будь-якої втоми. Endocrine Society рекомендує обстеження на синдром Кушинга за належної клінічної ймовірності з використанням відповідного методу; для слини потрібні повторні вимірювання, тоді як випадковий кортизол сироватки не рекомендують для діагностики. Відхилення потребує тлумачення з урахуванням методів та умов, а не вибору добавки для зниження числа. Учасники невеликих спортивних і TSST-досліджень не мали підтвердженого ендогенного гіперкортицизму.
Комбінації: біохімічні зв’язки без готового «стеку»
Поєднання PS із DHA, донорами холіну, PA, ашвагандою, магнієм і вітамінами B об’єднує різні теми метаболізму. Їх можна розглядати як окремі гіпотези, але для обов’язкової синергії або призначення всього набору потрібне випробування конкретної комбінації. Результат PS-DHA не доводить, що довільне додавання 1000–2000 мг риб’ячого жиру до будь-якого PS відтворює досліджений препарат. Слід відрізняти вільну DHA, DHA у різних ліпідах та фактичну масу PS у продукті.
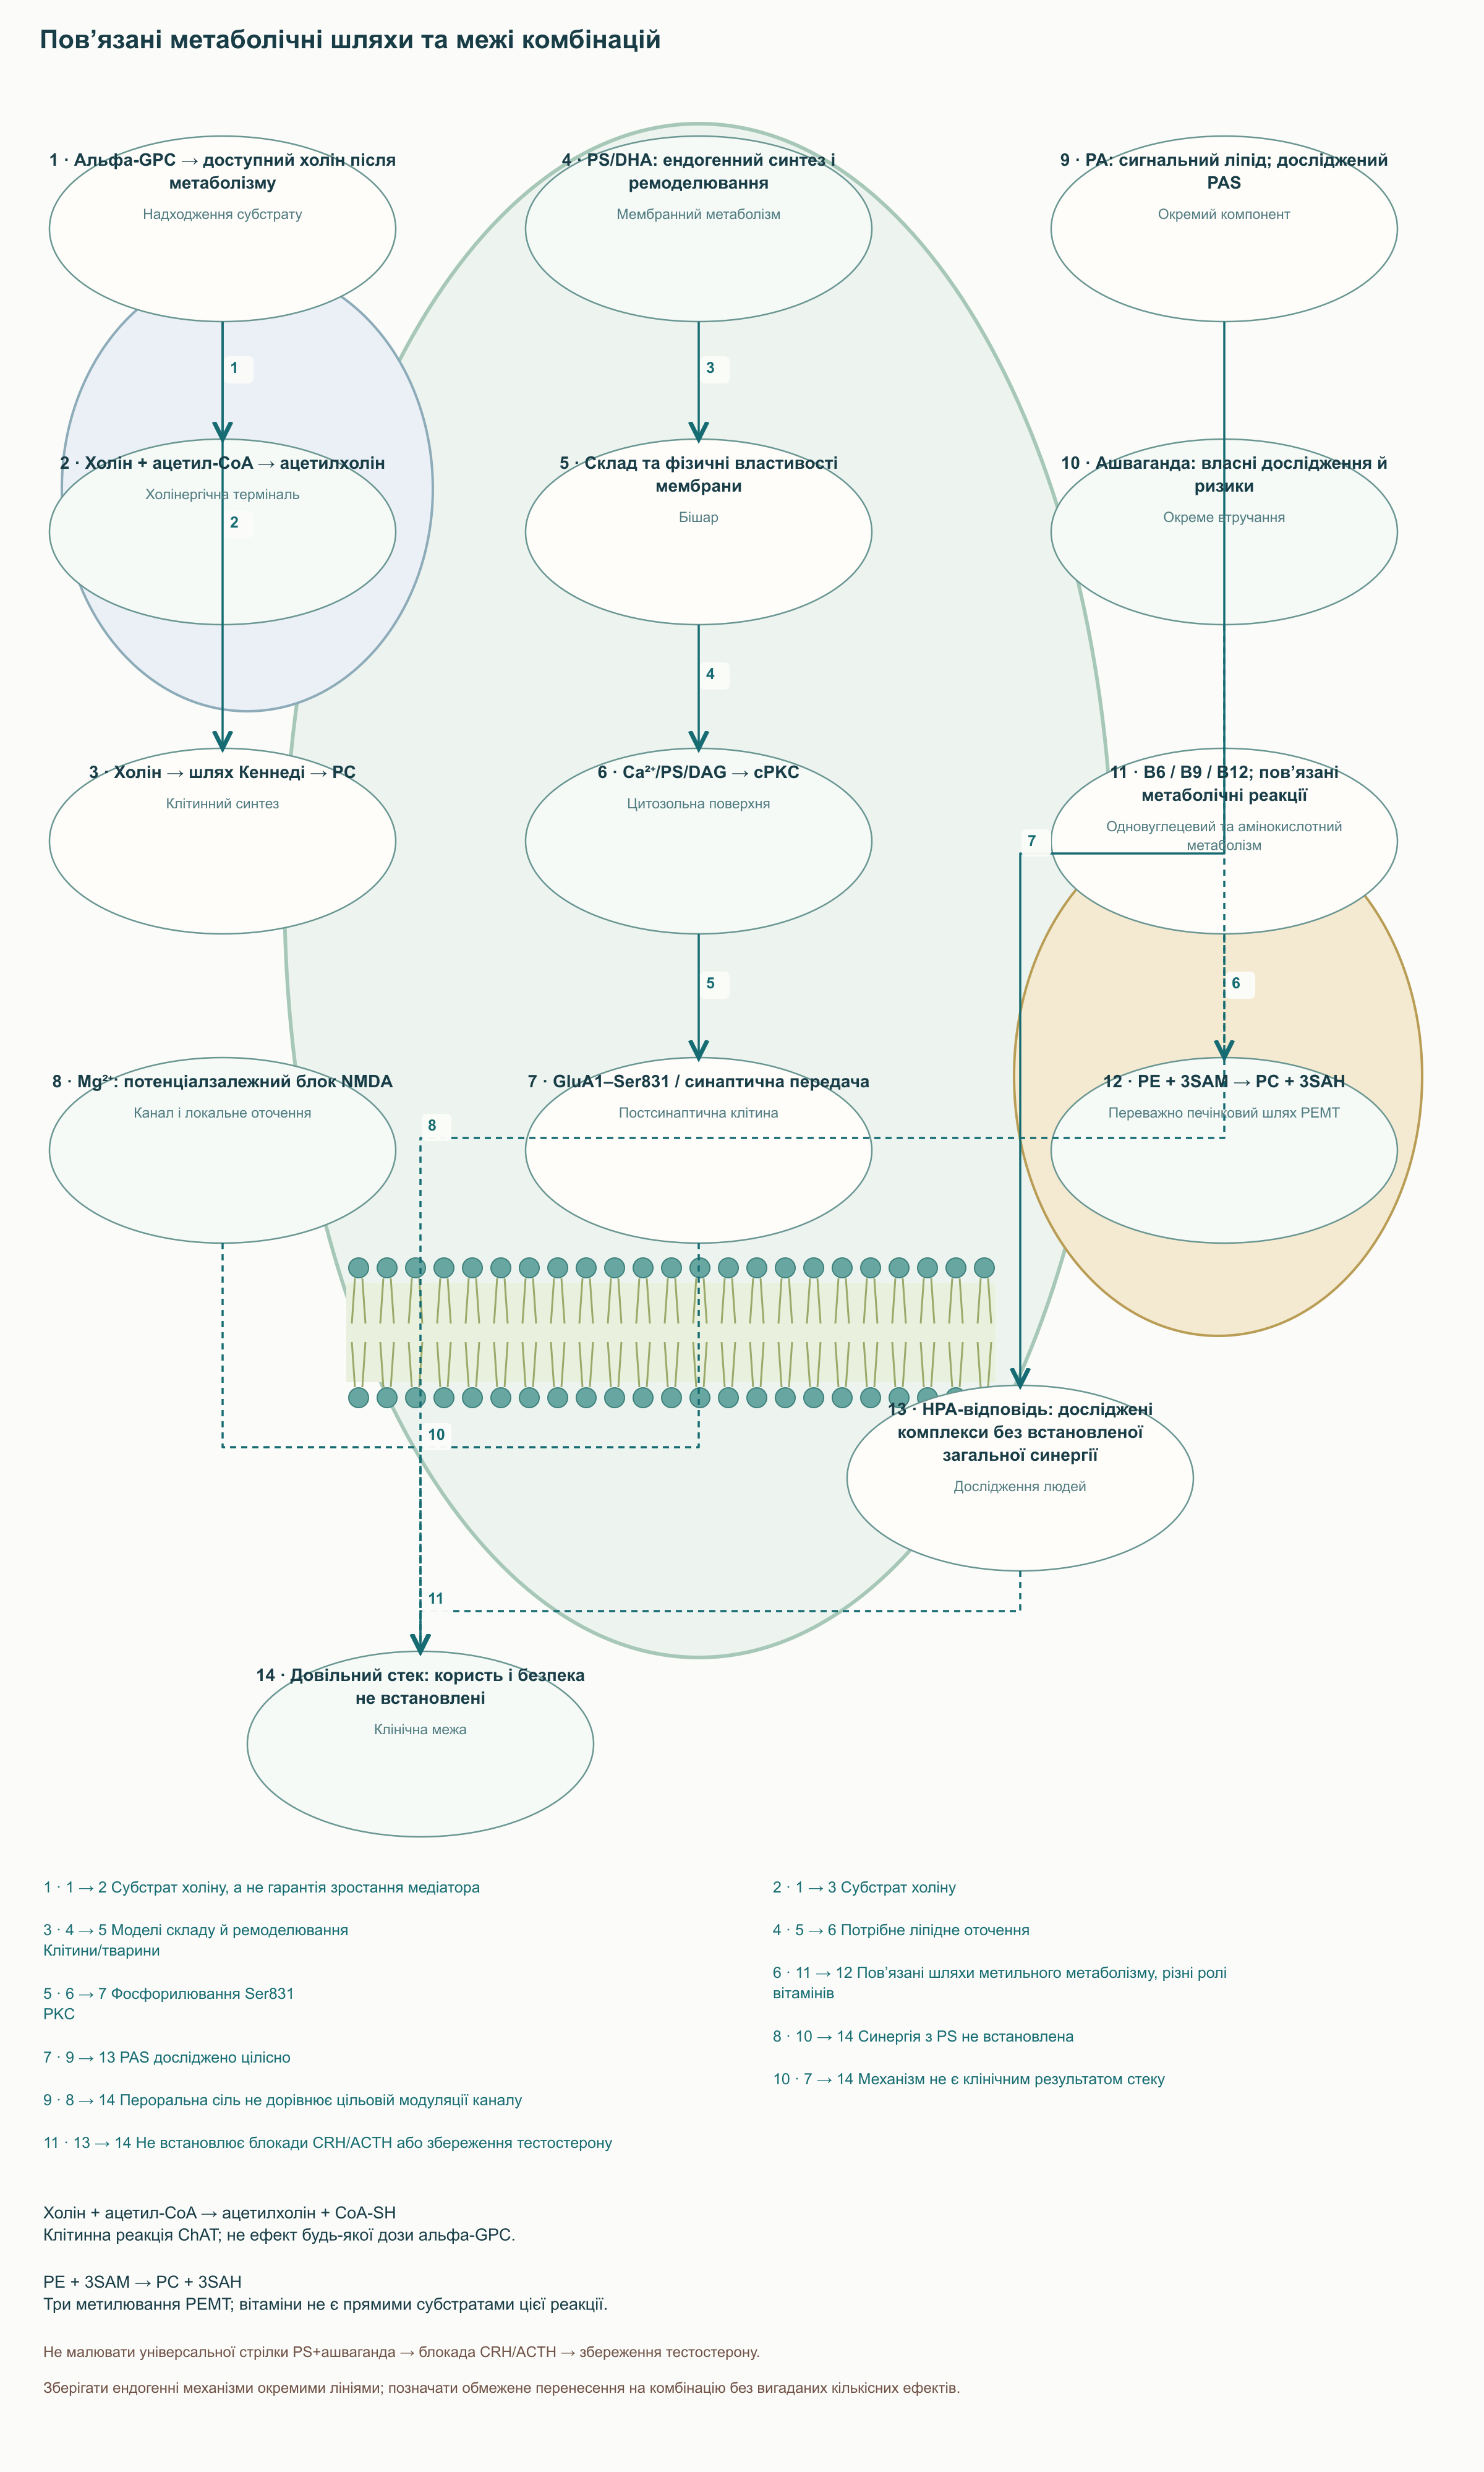
| Компонент вихідної комбінації | Збережений механізм | Практичне обмеження |
|---|---|---|
| DHA/EPA | DHA впливає на види та накопичення PS у клітинних і тваринних моделях | 1000–2000 мг омега-3 та DHA ≥500 мг не встановлені як обов’язкові супутники PS |
| Альфа-GPC | Холін пов’язаний із синтезом ацетилхоліну й PC через відповідні клітинні шляхи | 300–600 мг альфа-GPC з PS не доведені як спосіб відновлення мембранного балансу |
| Фосфатидна кислота | PA бере участь у сигналах; PAS досліджували як багатокомпонентний препарат | Результати PAS не дозволяють виділити синергію PS/PA або вплив на mTORC1 і м’язову масу |
| Ашваганда | Окремі екстракти досліджують щодо стресу й сну | 300–600 мг різних екстрактів та однакові відсотки вітанолідів не роблять їх взаємозамінними; комбінація з PS не встановлена |
| Магній | Mg²⁺ бере участь у потенціалзалежному блокуванні NMDA та багатьох ферментативних реакціях | 200–400 мг елементарного Mg не означають цільового керування NMDA або скрамблазами через добавку |
| B6, B9, B12 | Пов’язані з амінокислотним та одновуглецевим метаболізмом; SAM бере участь у метилюванні PE через PEMT | Немає підстав для високих доз без показань задля посилення PS; PEMT особливо важливий у печінці |
Холін може використовуватися у шляху Кеннеді для PC та в холінергічних терміналях для ацетилхоліну, але доступність субстрату не дорівнює збільшенню синаптичного нейромедіатора. Клітинні сигнальні ефекти PA так само не пояснюють автоматично зміни кортизолу після PAS. Магнієве блокування NMDA залежить від напруги й локального оточення; воно не означає, що сіль магнію запобігає експонуванню PS. B6, фолат і B12 мають різні ферментативні ролі, тому «всі є кофакторами синтезу SAM» слід замінювати описом конкретних пов’язаних реакцій.
Безпеку багатокомпонентної суміші також не можна вивести з переносимості PS. NCCIH зазначає для ашваганди шлунково-кишкові побічні ефекти, повідомлення про пошкодження печінки, обмеження під час вагітності й можливі лікарські взаємодії; твердження про прямий агонізм GABAₐ у людини не дає клінічного обґрунтування поєднання. Надлишок B6 із добавок може спричиняти сенсорну нейропатію; у 2023 році EFSA встановила UL для дорослих 12 мг на добу, тоді як у США межа становить 100 мг. Оцінювання «стеку» потребує індивідуальних доз і ризиків, а не загальної етикетки «підтримка мембран».
Переносимість, регуляторний статус і ліки
У роботі безпеки Jorissen та колег 2002 року 300 або 600 мг соєвого PS щодня протягом 12 тижнів не дали значущих відмінностей від плацебо за розглянутими клінічними та лабораторними показниками. Дані переносимості також опублікували для PS з омега-3: 300 мг PS із 79 мг DHA/EPA протягом 15 тижнів та подальшого продовження. Ці дані корисні для досліджених дорослих і термінів, але не встановлюють абсолютної безпеки будь-якої дози, під час вагітності або роками. Можливі шлунково-кишкові скарги й індивідуальна непереносимість; із малих вибірок не можна вивести поріг «лише понад 1000 мг» або точну рідкість подій.
GRAS стосується безпеки конкретного інгредієнта за зазначених умов застосування, а не схвалення PS як лікарського засобу. Для частини повідомлень FDA завершила розгляд без запитань щодо висновку заявника; інші процедури могли припинятися, тому один номер або досьє не встановлюють статусу всіх форм. Кваліфіковані заяви FDA щодо можливого зниження ризику когнітивної дисфункції та деменції містять формулювання про дуже обмежені й попередні дослідження. Такий порядок маркування не встановлює ані доведеної профілактики хвороб, ані універсальної ефективної дози, ані унікальності PS серед нутрицевтиків.
Результати токсикології тварин допомагають оцінювати інгредієнт, але LD₅₀ не є рекомендованою дозою для людини. Твердження «летальної дози не досягнуто понад 5 г/кг у приматів і гризунів» без точної речовини, моделі та первинного протоколу не слід використовувати як універсальну гарантію. Алергія залежить від вихідної сировини, очищення й залишкових білків, а не лише від логотипів «соя» або «Non-GMO». Вагітність, лактація та дитяче застосування потребують окремої оцінки, оскільки невелике випробування при РДУГ не замінює даних безпеки для всіх вікових груп.
Передбачувані взаємодії з антихолінергічними засобами та інгібіторами ацетилхолінестерази спираються переважно на механістичне міркування. Розглянуті випробування не встановлюють надійних кількісних правил зменшення ефектів атропіну або посилення донепезилу, ривастигміну й галантаміну. Це підстава повідомити клініциста про склад добавки та враховувати симптоми, а не самостійно змінювати призначені дози. Кілька продуктів для когнітивних скарг додатково ускладнюють причинне оцінювання нового симптому.
Зовнішній PS тромбоцитів сприяє коагуляції, але пероральна добавка та ліпідна поверхня активованого тромбоцита — різні об’єкти. Наведені дані не підтримують загальної гарантії незмінних INR, протромбінового часу й часу кровотечі для будь-якого препарату PS до 800 мг на добу. Відсутність підтвердження не встановлює шкідливої взаємодії, але вимагає уникати категоричного заспокоєння. INR використовують із варфарином, і це не універсальний показник усіх прямих пероральних антикоагулянтів; моніторинг визначає лікар для конкретного препарату та ситуації.
Як використовувати ці дані у професійній практиці
Механістичні розділи пояснюють фундаментальну клітинну роль PS: заряд і асиметрія створюють умови для сигнальних білків, а зовнішнє експонування змінює взаємодію з сусідніми клітинами. Клінічні розділи відповідають на вужчі питання щодо конкретних інгредієнтів і результатів: деяких гормональних відповідей, окремих тестів пам’яті або спортивного завдання. Між ними залишаються невирішеними доставлення, зміни потрібного мембранного пулу та відтворюваність ефекту. Ці питання мають бути видимими під час консультування, щоб професійне пояснення не перетворювалося на обіцянку впливу на кожен крок схеми.
Робочий вибір починається зі скарги й клінічного контексту, а потім враховує джерело сировини, масу PS, супутні інгредієнти та досліджену тривалість у найближчій популяції. Моніторинг може стосуватися повсякденного функціонування, повторюваного показника пам’яті або конкретного спортивного завдання, а не абстрактної «активації нейропластичності». Далі оцінюють результати, переносимість та інші зміни режиму, не приписуючи все поліпшення добавці. PS залишається цікавим предметом біохімічних і клінічних досліджень; його професійна цінність залежить від точності цих розмежувань.
Часті питання
PS знижує кортизол у всіх?
Ні. Гормональні результати залежать від навантаження, початкової реактивності та складу препарату. Частина випробувань не знайшла ефекту, а в окремих підгрупах напрямок відповіді відрізнявся.
39% — це зменшення площі під кривою?
У Starks 39% стосується піка кортизолу, а 35% — AUC. Вони описують різні сторони часової відповіді й не дорівнюють зменшенню розпаду м’язового білка.
Рослинний PS еквівалентний PS із мозку ВРХ?
Спільна головка підтримує подібність деяких біохімічних властивостей. Повну клінічну біоеквівалентність різних джерел та ацильних складів безпосередньо не встановлено.
PS доведений для глибокого сну?
Розглянуті дослідження не встановлюють режиму 300–500 мг за годину до сну або збільшення NREM-сну. Скарги на вечірнє перезбудження також не діагностують надлишок кортизолу.
PS замінює лікування деменції або РДУГ?
Ні. Історичні й невеликі випробування окремих тестів не доводять уповільнення нейродегенерації або еквівалентності рекомендованому лікуванню. Прогресивне порушення потребує клінічної оцінки.
Обов’язковий стек із DHA та магнієм потрібний?
Розглянуті дослідження не встановлюють такого стандарту. Результати конкретних препаратів PS-DHA та PAS не можна переносити на довільні суміші; кожен додатковий інгредієнт має власні обмеження.
Джерела
- Tsui, Ojcius, Hubbell, 1986. The intrinsic pKa values for phosphatidylserine and phosphatidylethanolamine in phosphatidylcholine host bilayers
- Tomohiro et al., 2009. Substrate specificity of human phosphatidylserine synthases 1 and 2
- Митохондриальный транспорт и декарбоксилирование фосфатидилсерина: экспериментальное исследование, 1992
- Kim et al., 2004. DHA-содержащие субстраты и синтез фосфатидилсерина
- Akbar et al., 2005. Docosahexaenoic acid: a positive modulator of Akt signaling in neuronal survival
- PSS2 и синтез DHA-содержащих видов PS: первичное исследование, 2012
- Coleman et al., 2009. Транспортная функция очищенной ATP8A2
- ATP8A2–CDC50A: первичное исследование комплекса, 2011
- ATP8A1–CDC50A: первичное исследование, 2013
- Segawa et al., 2014. Caspase-mediated cleavage of phospholipid flippase for apoptotic phosphatidylserine exposure
- Segawa et al., 2016. Регуляция ATP11A кальцием и каспазами
- Suzuki et al., 2010. Calcium-dependent phospholipid scrambling by TMEM16F
- Suzuki et al., 2013. Xk-related protein 8 and CED-8 promote phosphatidylserine exposure in apoptotic cells
- Headgroup-specific Exposure of Phospholipids in ABCA1-expressing Cells, 2005
- ABCB4 exports phosphatidylcholine in a sphingomyelin-dependent manner, 2015
- Miyanishi et al., 2007. Identification of Tim4 as a phosphatidylserine receptor
- Park et al., 2007. BAI1 is an engulfment receptor for apoptotic cells upstream of the ELMO/Dock180/Rac module
- Lew et al., 2014. Лигандная селективность TAM-рецепторов
- Hanayama et al., 2002. Identification of a factor that links apoptotic cells to phagocytes
- Fujii et al., 2015. TMEM16F и экспонирование PS тромбоцитами мышей
- Verdaguer et al., 1999. Структура C2-домена PKCα с PS и кальцием
- Leonard et al., 2011. Структура и аллостерическая активация PKCβII
- Roche et al., 1996. Characterization of multiple phosphorylation sites on the AMPA receptor GluR1 subunit
- Derkach et al., 1999. CaMKII и проводимость AMPA-рецепторов
- PKC, Ser831 GluA1 и проводимость AMPAR: первичное исследование, 2012
- He et al., 2009. Ser845 и перисинаптические AMPA-рецепторы
- Levy, Warr, Attwell, 1998. Stoichiometry of the glial glutamate transporter GLT-1 expressed inducibly in a Chinese hamster ovary cell line selected for low endogenous Na+-dependent glutamate uptake
- Garrahan, Glynn, 1967. The stoicheiometry of the sodium pump
- Rose et al., 2009. Glutamate Transporter Coupling to Na,K-ATPase
- Huang et al., 2011. Phosphatidylserine is a critical modulator for Akt activation
- Ghosh et al., 1994. Взаимодействие цистеин-богатого региона Raf с PS-липосомами
- Arthur et al., 2004. MSK1 и нейротрофин-индуцированное фосфорилирование CREB
- Endotext. Stress: Endocrine Physiology and Pathophysiology
- Clark et al., 1994. The purification, cloning, and expression of a novel luteinizing hormone-induced mitochondrial protein in MA-10 mouse Leydig tumor cells. Characterization of the steroidogenic acute regulatory protein (StAR)
- Steroidogenic acute regulatory protein (StAR) acts on the outside of mitochondria to stimulate steroidogenesis
- Watanabe, Gould, McEwen, 1992. Stress induces atrophy of apical dendrites of hippocampal CA3 pyramidal neurons
- Structure of Hsp90–Hsp70–Hop–GR reveals the Hsp90 client-loading mechanism, 2022
- Structure of Hsp90–p23–GR reveals the Hsp90 client-remodelling mechanism, 2022
- Bruni et al., 1992. Метаболизм лизофосфолипидов в слизистой кишечника крысы
- Palatini et al., 1991. Метаболизм меченых PS-липосом после внутривенного введения крысам
- Nguyen et al., 2014. Mfsd2a is a transporter for the essential omega-3 fatty acid docosahexaenoic acid
- Структурно-функциональное исследование человеческого MFSD2A, 2016
- Первичное исследование подбора PLD для производства PS
- FDA Announces Final Rule on Bovine Spongiform Encephalopathy
- CDC. Infection Control for CJD
- Health Canada. Summary of the assessment of phosphatidylserine from soy lecithin as a supplemental ingredient
- Monteleone et al., 1990. Effects of phosphatidylserine on the neuroendocrine response to physical stress in humans
- Monteleone et al., 1992. Blunting by chronic phosphatidylserine administration of the stress-induced activation of the hypothalamo-pituitary-adrenal axis in healthy men
- Fahey, Pearl, 1998. The hormonal and perceptive effects of phosphatidylserine administration during two weeks of resistive exercise-induced overtraining. Авторское резюме оригинальной работы
- Starks et al., 2008. The effects of phosphatidylserine on endocrine response to moderate intensity exercise
- Kingsley et al., 2006. Effects of phosphatidylserine on exercise capacity during cycling in active males
- Kingsley et al., 2005. Effects of phosphatidylserine on oxidative stress following intermittent running
- Kingsley et al., 2006. Phosphatidylserine supplementation and recovery following downhill running
- Jäger et al., 2007. The effect of phosphatidylserine on golf performance
- Crook et al., 1991. Effects of phosphatidylserine in age-associated memory impairment
- Cenacchi et al., 1993. Cognitive decline in the elderly: a double-blind, placebo-controlled multicenter study on efficacy of phosphatidylserine administration. Полный текст оригинала
- Jorissen et al., 2001. The influence of soy-derived phosphatidylserine on cognition in age-associated memory impairment
- Kato-Kataoka et al., 2010. Soybean-derived phosphatidylserine improves memory function of the elderly Japanese subjects with memory complaints
- Vakhapova et al., 2010. Phosphatidylserine containing omega-3 fatty acids may improve memory abilities in non-demented elderly with memory complaints: a double-blind placebo-controlled trial
- Vakhapova et al., 2014. Phosphatidylserine containing omega-3 fatty acids may improve memory abilities in nondemented elderly individuals with memory complaints: results from an open-label extension study
- Vakhapova et al., 2011. Safety of phosphatidylserine containing omega-3 fatty acids in non-demented elderly: a double-blind placebo-controlled trial followed by an open-label extension
- Hirayama et al., 2014. The effect of phosphatidylserine administration on memory and symptoms of attention-deficit hyperactivity disorder: a randomised, double-blind, placebo-controlled clinical trial
- NICE NG87. Attention deficit hyperactivity disorder: diagnosis and management
- Hellhammer et al., 2004. Effects of soy lecithin phosphatidic acid and phosphatidylserine complex (PAS) on the endocrine and psychological responses to mental stress
- Hellhammer et al., 2012. Omega-3 fatty acids administered in phosphatidylserine improved certain aspects of high chronic stress in men. Nutrition Research 32:241–250
- Hellhammer et al., 2014. A soy-based phosphatidylserine/phosphatidic acid complex (PAS) normalizes the stress reactivity of hypothalamus-pituitary-adrenal-axis in chronically stressed male subjects: a randomized, placebo-controlled study
- Benton et al., 2001. The Influence of Phosphatidylserine Supplementation on Mood and Heart Rate when Faced with an Acute Stressor
- Moré et al., 2014. Positive Effects of Soy Lecithin-Derived Phosphatidylserine plus Phosphatidic Acid on Memory, Cognition, Daily Functioning, and Mood in Elderly Patients with Alzheimer’s Disease and Dementia
- Endocrine Society. The Diagnosis of Cushing’s Syndrome: Clinical Practice Guideline
- NCCIH. Ashwagandha: Usefulness and Safety
- NIH ODS. Vitamin B6: Fact Sheet for Health Professionals
- NIH ODS. Choline: Fact Sheet for Health Professionals
- Jorissen et al., 2002. Safety of soy-derived phosphatidylserine in elderly people
- FDA. A Food Labeling Guide: qualified health claims, phosphatidylserine, печатная страница 108
- FDA. Qualified Health Claims: Letters of Enforcement Discretion
- FDA. GRAS Notice 186: enzymatically modified soy lecithin
- FDA. GRAS Notice 545: phosphatidylserine derived from sunflower lecithin
- FDA. GRAS Notice 643: phosphatidylserine derived from fish. Оценка прекращена по просьбе заявителя
- CDC. Clinical Overview of Variant Creutzfeldt-Jakob Disease
- Queensland Health. Anticoagulant Guideline for Hospitalised Adult Patients