
Теломерлер, p53 және митохондриялар: геном қорғанысы мен жасуша энергиясының байланысы
Теломер қорғанысы, DDR және p53–PGC геномды митохондрия энергиясымен байланыстырады. Shelterin, BER, тышқан тәжірибелері, теломер аурулары және араласу қорытындысының шегі.
Хромосома ұшы — ұзындығын жаспен салыстыруға болатын ДНҚ бөлігі ғана емес. Теломер қайталамалары, ұштың пішіні және shelterin ақуыздары жасушаның оны қалыпты құрылым немесе зақым деп тануын бірге анықтайды. Қорғаныс бұзылса, ДНҚ зақымына жауап қосылып, бөліну шектелуі, сенесценция не апоптоз туындауы және метаболизм өзгеруі мүмкін. Кейбір тәжірибелік жағдайларда p53 бұл сигналды митохондрияны қолдайтын PGC-1α және PGC-1β коактиваторларын тежеумен байланыстырады.
Sahin және Jaskelioff әріптестері теломераза тапшылығы бар арнайы тышқан модельдерінде себептік байланыстарды көрсетті. Бұл теломер дисфункциясын түсіндіреді, бірақ адам қартаюының барлық түрін бір жолмен түсіндірмейді және теломерді ұзартуды дайын емге айналдырмайды. Ұзындық, ұш қорғанысы, теломераза белсенділігі, метаболизм және клиникалық нәтиже байланысты болғанымен, бірін-бірі алмастырмайды.
1. Геномды көшірудің шектері
Каррель өсінділерінен репликативті сенесценцияға дейін
Жасушалық өсінділердің өлместігі жөніндегі ерте көзқарастар Алексис Каррель тәжірибелеріне де сүйенді. Леонард Хейфлик пен Пол Мурхед 1961 жылы адамның қалыпты диплоидты жасушаларының өсіндіде шектеулі репликативті мүмкіндігін көрсетті. Популяцияның екі еселену саны бастапқы материалға, өсіру жағдайына және тоқтау анықтамасына тәуелді. Бірнеше ондаған бөліну — белгілі жүйелердің сипаттамасы, барлық жасушаның әмбебап тұрақтысы емес. WI-38 және MRC-5 желілері тарихтың бөлек кезеңдеріне жатады; екеуін де бір 1961 жылғы тәжірибеге телуге болмайды.
Сенесцентті жасуша бөлінуі тұрақты шектелсе де тірі, метаболизмдік белсенді күйде қалады. pH 6 кезіндегі SA-β-gal, кей модельдегі SAHF хроматин өзгерістері және SASP секреторлық фенотипі оны сипаттайды. Бір белгі барлық жағдайда диагноз бермейді. Репликативті, стресс арқылы ерте және HRASV12 тәрізді онкогендік сигналдан туатын сенесценция DDR мен p53/p21-ге тоғысуы мүмкін, бірақ бастапқы зақым мен жағдайы әртүрлі.
Ұштың толық көшірілмеуі және жаңа ұштың өңделуі
ДНҚ полимеразасы бар 3′-OH ұшын ұзартып, 5′→3′ бағытта синтездейді. Кешігуші тізбекте полимераза α–праймаза Оказаки фрагменттеріне праймер жасайды. Соңғы РНҚ праймері алынғанда шеткі аймақты толтыру үшін жарамды көрші 3′ ұш қалмауы мүмкін. Бұл Уотсон мен Оловников 1970-жылдардың басында талқылаған ұш репликациясы мәселесінің негізі.
Қазіргі түсінік соңғы праймердің жоғалуымен шектелмейді. RNase H және FEN1 праймерді өңдейді; репликациядан кейінгі 3′ шығыңқы ұшты жасауға Apollo/DCLRE1B, EXO1 және басқа факторлар қатысады. Теломераза G-ге бай тізбекке қайталамалар қосады, CST комплементарлы C-тізбектің толтырылуын үйлестіреді. Белгілі өсіндідегі бір бөлінуге ондаған немесе жүздеген жұп негіз жоғалуын ағзадағы әр жасушаға көшіруге болмайды. Жеткілікті теломераза ұзарту мен өңдеу балансын өзгертеді.
TTAGGG, 3′ ұш және G-квадруплекстер
Адам теломерінің қайталамалары сызбалық түрде:
G-ге бай тізбек бір тізбекті 3′ шығыңқы ұш түзеді. Оның және тұтас трактінің ұзындығы жасуша түрі мен цикл фазасына қарай өзгереді. Бірнеше–оннан астам килобаза тракт пен ондаған–жүздеген нуклеотид ұш — белгілі өлшеулер ауқымы, әр теломердің міндетті өлшемі емес. Лейкоцит теломерінің орташа ұзындығы қан жасушаларының құрамына да тәуелді; ол жүрек немесе мидағы әр хромосома ұшын тікелей көрсетпейді.
Көршілес гуаниндер G-квадруплекс түзе алады. Гуанин квартеттері Хугстин байланыстарымен және әсіресе K⁺ катионымен тұрақтанады. Бұл фермент қолжетімділігін, репликацияны және ақуыз байланысын өзгертеді. Оқшау тізбектің квадруплекс түзу қабілеті барлық теломер үнемі сол пішінде болады дегенді білдірмейді.
T-ілмек пен D-ілмек: қорғаныс динамикалық
Griffith және әріптестері 1999 жылы электрондық микроскоппен ірі T-ілмектерді көрсетті. 3′ ұш қос тізбекті теломер аймағына еніп, комплементарлы тізбекпен жұптасады; басқа тізбектің жергілікті ығысуы D-ілмек жасайды. Бұл табиғи хромосома ұшын еркін қос тізбекті үзілістен ажыратуға көмектеседі.
Қорғаныс үнемі герметикалық жабылу емес. Ұш репликациядан, жетілуден және қажет болса теломеразалық ұзарудан өтеді. Ілмек пен ақуыздар уақыт ішінде қайта ұйымдасады. Теломер D-ілмегін кейін сипатталатын митохондрия ДНҚ-сының реттеуші D-loop аймағымен шатастырмау керек.
2. Shelterin хромосома ұшын қорғайды
Алты компонент және құрылымдардың мағынасы
Shelterin құрамына TRF1, TRF2, POT1, TIN2, TPP1 және RAP1 кіреді. TRF1/TRF2 ДНҚ байланыстырушы домендерімен қос тізбекті қайталамаларды таниды, ал TRFH домендері димерлену мен серіктес байланысына қатысады. TRF1 геликазалармен бірге күрделі теломер субстратын көшіруге көмектеседі. TRF2 ұш қорғанысы, ATM және классикалық ұш бірігуін шектеу үшін маңызды.
POT1 бір тізбекті ДНҚ-ны байланыстырады. TPP1 оны басқа компоненттермен жалғап, TEL patch арқылы теломераза тартылуы мен процессивтілігін қолдайды. TIN2 көпір қызметін атқарады, RAP1 TRF2-мен байланысып, кей рекомбинация мен қорғаныс жолына әсер етеді. Қызметтер қабаттасады әрі модельге тәуелді; әр ақуызға бір толық оқшау міндет беру жеткіліксіз.
Құрылымдық жазбалар нақты тәжірибелік конструкцияны көрсетеді. PDB 1XJV — адамның POT1 ақуызы мен бір тізбекті теломер ДНҚ-сы, 2I46 — адам TPP1. 3BQO TRF1 TRFH доменін TIN2 пептидімен, 5XYF TIN2–TPP1–TRF2 кешенін береді. Бұлар тұтас T-ілмектің атомдық моделі емес. Бөлек доменнің аффинділігі толық in vivo жүйенің тұрақтысы болмайды.
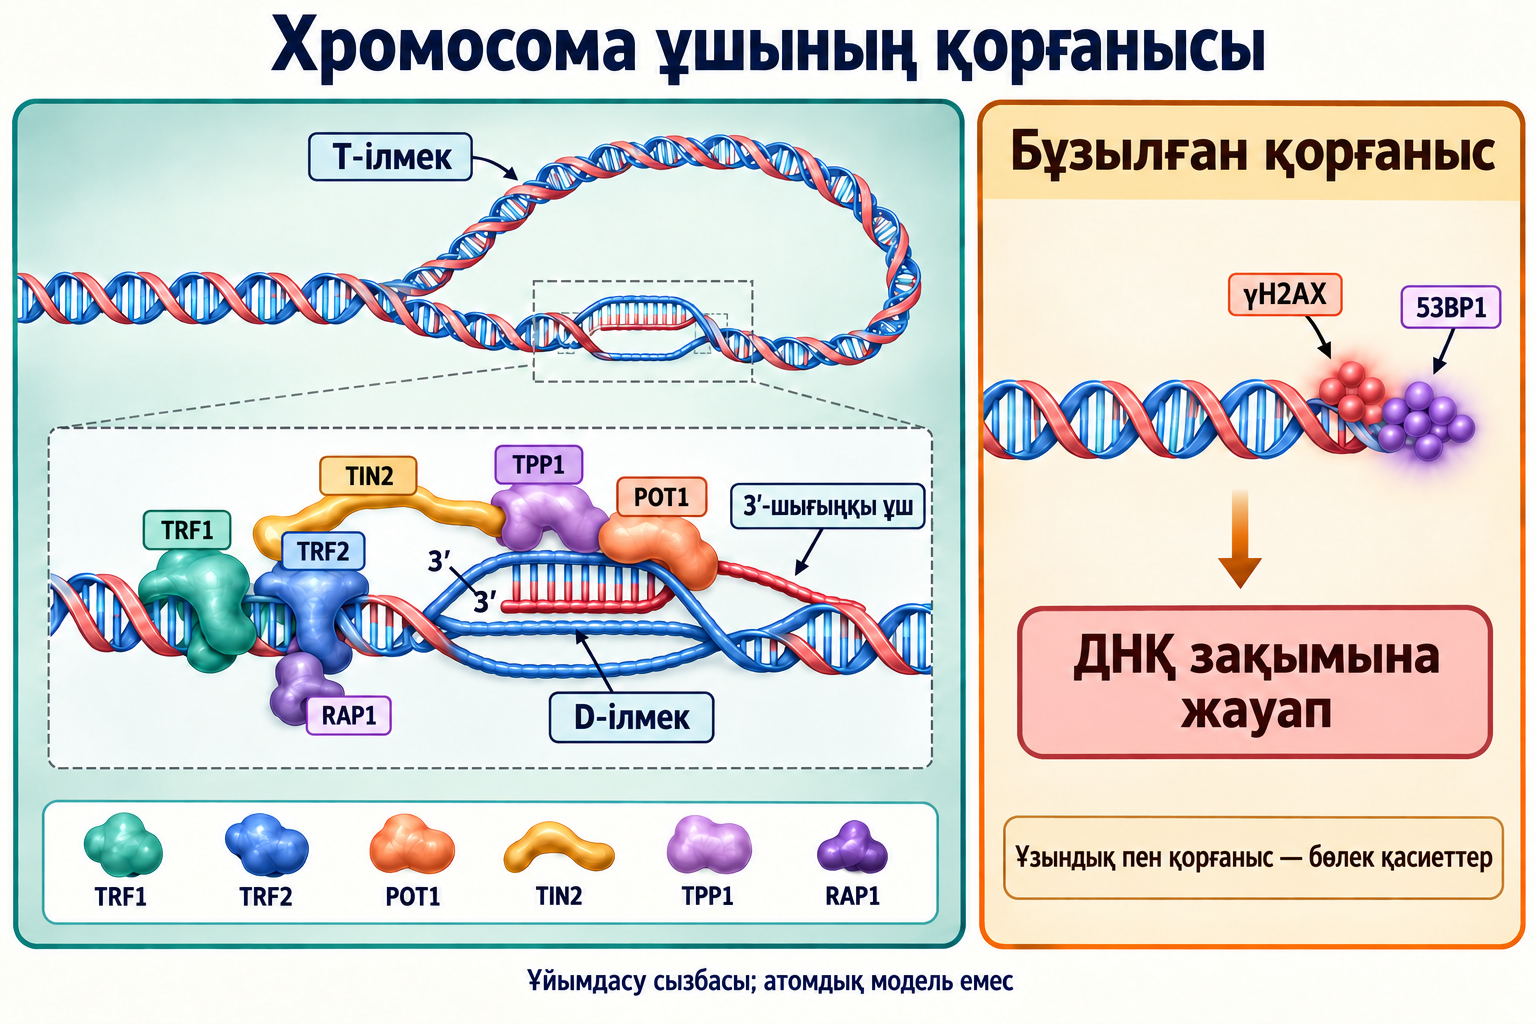
Қалыпты ұш ATM мен ATR-ды қалай шектейді
TRF2 жоғалуы қайталамалар сақталса да ATM-ды іске қоса алады. POT1 қорғанысы жоғалса, RPA байланысы мен ATR жауабы жеңілдейді. Сондықтан ДНҚ мөлшері мен қорғаныс сапасы бөлек қасиет. Ұшты ілмек ішінде жасыру маңызды, бірақ DDR ақуыз контактілері, хроматин қолжетімділігі және өңдеу арқылы да реттеледі.
Shelterin барлық репарацияны жоймайды. Репликациялық аралық құрылымдар шешілуі, зақымдалған негіздер өңделуі, жаңа ұш жетілуі керек. Жүйе қажет реакцияларды өткізіп, қауіптісін, әсіресе әртүрлі хромосоманың қосылуын шектейді.
Ұш бірігуі және реттелген рекомбинация
Классикалық гомологты емес бірігу c-NHEJ Ku70/Ku80, DNA-PKcs және XRCC4–лигаза IV-ті қолданады. Қалыпты теломерді үзіліс деп қабылдау хромосома қосылуы мен үзіліс–бірігу–көпір циклдеріне әкелуі мүмкін; shelterin бұған қарсы тұрады. POLQ-тәуелді микрогомология арқылы қосылу сияқты баламаларда басқа қатысушылар бар. PARP1 және лигаза III үлесі жағдайға тәуелді, c-NHEJ-мен бірдей емес.
Гомологтық рекомбинация теломер биологиясынан жойылмайды, реттеледі. Ол кей аралық құрылымды өңдейді; ісіктің бір бөлігіндегі ALT теломерді баламалы ұзарту үшін рекомбинацияны қолданады. RAD51, BLM, SLX4 әртүрлі қызмет атқарады. SLX4-ті RAD51-дің жай өшіргіші, ал қалыпты теломерді барлық гомологтық реакцияның толық тыйымы деп сипаттау дұрыс емес.
3. Ұш дисфункциясынан p53-ке дейін
Ең қысқа ұш, қорғаныстың ашылуы және TIF
Бір немесе бірнеше қатты зақымдалған ұш орташа ұзындықтан маңызды болуы мүмкін. Зақым не ақуыз жоғалуы айқын қысқармай-ақ қорғанысты аша алады. Кез келген ұш барлық ұлпада 1,5 немесе 3 кб-дан кейін міндетті түрде жөнделмейтін болады деген әмбебап шек жоқ.
Теломер дисфункциясының фокустары TIF теломер сигналы мен γH2AX/53BP1 тәрізді DDR маркерінің бірге орналасуы арқылы анықталады. FISH иммунофлуоресценциямен біріктіріледі; ақуыздық маркерлердің әдістемелік шегі ескеріледі. TIF аймақтық жауапты көрсетеді, бірақ ұзындықты, бастапқы зақымды немесе жасуша тағдырының қайтымсыздығын өзі өлшемейді. Тұрақты фокус репликация мен жетілудегі динамикалық сигналдан ажыратылуы керек.
MRN–ATM және RPA–ATR әртүрлі субстраттарға жауап береді
MRE11, RAD50, NBS1-ден тұратын MRN қос тізбекті зақымды тануға, өңдеуге және ATM тартуға қатысады. ATM Ser1981 автофосфорлануы жиі белсенділік маркері, бірақ бүкіл реттеуді бір модификациядан кейінгі димердің міндетті ыдырауына теңеуге болмайды. Үзіліс геометриясы, MRN, хроматин мен басқа өзгерістер де маңызды.
ATR негізінен RPA жапқан бір тізбекті ДНҚ-ға жауап беріп, ATRIP-пен байланысады. RAD9–RAD1–HUS1 немесе 9-1-1 кешені, RAD17 жүктеуі және TOPBP1 белсенуі сигналды қолдайды. ETAA1 сияқты басқа белсендіру жолдары бар. Екі схема толық тәуелсіз тізбек емес: резекция, репликация айырының тоқтауы және цикл фазасы үлесті өзгертеді.
γH2AX, MDC1 және хроматин белгілері
H2AX Ser139 фосфорлануы γH2AX түзеді. Бұл трансляциядан кейінгі хроматин өзгерісі, өздігінен тұқым қуалайтын эпигенетикалық жад дәлелі емес. MDC1 BRCT домендерімен фосфорланған аймақты танып, DDR платформасын кеңейтеді. RNF8/RNF168 убиквитин сигналдарын ұйымдастырады.
53BP1 белгілердің қосындысын оқиды: Tudor домені H4K20me2-ні, UDR аймағы убиквитинделген H2A-ны, әсіресе H2AK15ub-ты таниды. Tudor-ға K63-полиубиквитинді негізгі тікелей лиганд ретінде телу қате. Көшірілген хроматин, белгі қолжетімділігі және BRCA1 жолдарының қарсы әсері жөндеу таңдауына ықпал етеді. 53BP1 фокусы p53 әр фокустың физикалық бөлігі екенін білдірмейді.
Chk2, Chk1 және жасушалық цикл
ATM арқылы Chk2 Thr68 фосфорлануы FHA байланыстарын, димерленуді және Thr383/Thr387 белсендіруші өзгерістерін қолдайды. ATR Chk1 Ser317/Ser345-ті фосфорлай алады; Claspin сигналды репликациялық стресспен байланыстырады. Бұл киназалар цикл реттегіштеріне әсер етіп, жөндеу мен бөліну үзілісін үйлестіреді.
Олар бір міндетті тағдырды белгілемейді. Шағын уақытша зақымнан кейін бөліну қайтуы мүмкін; ұзақ күшті сигнал сенесценцияға, апоптозға не басқа өзгеріске әкеледі. p53, p21, p16/RB, жасуша түрі, митохондрия және тірі қалу сигналдары шешімге қатысады. Бірдей фосфорланған орын өсінді мен тұтас ұлпада бірдей нәтиже бермейді.
p53 және MDM2: тұрақтану реттеледі
Базалық жағдайда E3-лигаза MDM2 p53 трансактивация аймағын байланыстырып, белсенділігін шектейді және убиквитиндену мен протеасомалық жойылуды қолдайды. PDB 1YCR MDM2 мен p53 фрагментін көрсетеді; Phe19, Trp23, Leu26 гидрофобтық интерфейсте маңызды. Бұл тұтас стресс кешені емес. C-ұш лизиндері 370, 372, 373, 381, 382, 386 басқа реттеуші модификацияларға да қатысады.
ДНҚ зақымында ATM, Chk және басқа реттегіштер екі ақуызды өзгертеді. p53 Ser15/Ser20 мен MDM2 Ser395 — желінің бір бөлігі; ацетилдену мен кері байланыс та маңызды. Ақуыз өмірі нақты жағдайда ұзарады, бірақ барлық жасушаға тұрақты 4–6 сағат не толық қайтымсыз ажырау телінбейді.
p53 тетрамер ретінде жұмыс істейді; PDB 1C26 тетрамерлену доменін сипаттайды. p21 арқылы циклді шектеп, басқа жағдайда апоптоздық және метаболизмдік гендерді реттейді. Қалыпты қызмет SCO2/TIGAR арқылы тыныс алу мен бейімделуді қолдай алады. PGC тежелуі p53 барлық митохондрияға зиян дегенді немесе оны ем үшін өшіруді негіздемейді.
4. Теломер–p53–PGC тәжірибелері нені көрсетті
Теломераза тапшылығының фенотипі модельге тәуелді
Tert не Terc жойылса, барлық теломер бірден жоғалмайды. Көп зертханалық тышқанның бастапқы теломері адамнан ұзынырақ; ауыр белгілер тапшылықтың бірнеше буынында жиналады. Генетикалық фон, бастапқы ұзындық және шағылыстыру сызбасы уақытты өзгертеді. Алғашқы үш буын үнемі қалыпты, төртіншісі үнемі күйрейді деген ереже тым қатаң.
Жылдам жаңаратын ұлпаның бұзылуы регенерация шектелуімен түсіндіріледі. Аз бөлінетін мүшелер нәтижесі ядролық стресс жүрек пен бауырды бөлінетін жасушалар санынан тыс қалай әлсірететінін сұратты. Оны транскрипция, mtDNA және функция арқылы зерттеді.
Sahin 2011: анықталған шегі бар себептік тәжірибе
Sahin және әріптестері теломеразасыз тышқан ұлпалары мен жасушаларында дисфункцияны төмен PGC-1α/β және метаболизмдік-энергетикалық өзгерістермен байланыстырды. Tert немесе PGC-1α жеткізу, p53 мәртебесін өзгерту кей көрсеткішті жақсартып, себептік үлесті қолдады. Қалпына келу соңғы нүктеге тәуелді және жартылай нәтижелер де болды.
Бір салыстырудағы экспрессияның толық қалпына келуі бүкіл ағзаның қалпына келуі емес. Жүрек тәжірибесі доксорубицин туғызған кардиомиопатияны қамтыды; жиырылудың жақсаруы барлық жасқа байланысты жеткіліксіздікті жоюды білдірмейді. Басқа теломер салдарының тәуелсіз үлесі сақталады.
PPARGC1A және PPARGC1B промоторлары
Бұл гендер PGC-1α/β-ны кодтайды. Репортер және хроматин иммунопреципитациясы ChIP p53-тәуелді тежелу мен тышқан промоторына байланысты көрсетті. Бұл ChIP-seq емес және бүкіл адам ағзасына бір пайыз репрессия бермейді. Координаттар белгілі фрагмент пен қабылданған транскрипция басталуына қатысты.
p53 жауап элементінің классикалық консенсусы:
R — пурин, Y — пиримидин, W — A не T. Бұл әр сайттың дәл тізбегі емес, өзгермелі мотив. Хроматин, сайт сапасы, саны және серіктестер реттеуге қатысады. Sin3/HDAC корепрессорлары p53 биологиясында бар, бірақ осы жұмыстан міндетті жалғыз mSin3A–HDAC1/2 тізбегі тікелей дәлелденді деп айтуға болмайды.
PGC барлық митохондрияны қосатын өшіргіш емес
PGC-1α 1990-жылдардың соңында, PGC-1β кейін сипатталды. Олар транскрипция факторларымен, p300/CBP және Mediator аппаратымен жұмыс істейді, ДНҚ тізбегін өздері дербес танымайды. NRF1, GABP, ERRα, PPAR серіктестері бағдарламаны ұлпа мен күйге қарай өзгертеді.
Классикалық тыныс алу факторлары әдебиетіндегі NRF-2 — GABPA/GABPB-дан құралған GABP. NFE2L2 кодтайтын антиоксидант NRF2 — басқа ақуыз. Екі атауды араластыру әртүрлі бағдарламаны біріктіреді. PGC төмендеуі таңдалған нысананы әлсіретеді, барлық NRF, ERRα немесе тыныс алу ақуызы жоғалады деген сөз емес.
TFAM, mtDNA қапталуы және D-loop
TFAM HMG домендерімен mtDNA-ны байланыстырып, иіп, қаптау мен транскрипцияға қатысады. Оның mtDNA-ға қатынасы маңызды: тапшылық пен шамадан тыс қаптау бөлек әсер етеді. POLRMT/TFB2M транскрипцияға, TEFM ұзаруға, POLG/TWINKLE репликацияға қатысады. РНҚ праймерлері мен реттеуші аймақ процестерді байланыстырады.
TFAM азаюы көшірме саны мен экспрессия өзгерісіне қатар жүруі мүмкін, бірақ D-ілмек репликациясы толық бұғатталды деу жеткіліксіз. D-loop — геномның реттеуші аймағы мен құрылымы, бөлек ферменттік қадам емес. Көшірме, нуклеоид сапасы, транскрипция және тыныс алу мүмкіндігі бөлек өлшенеді.
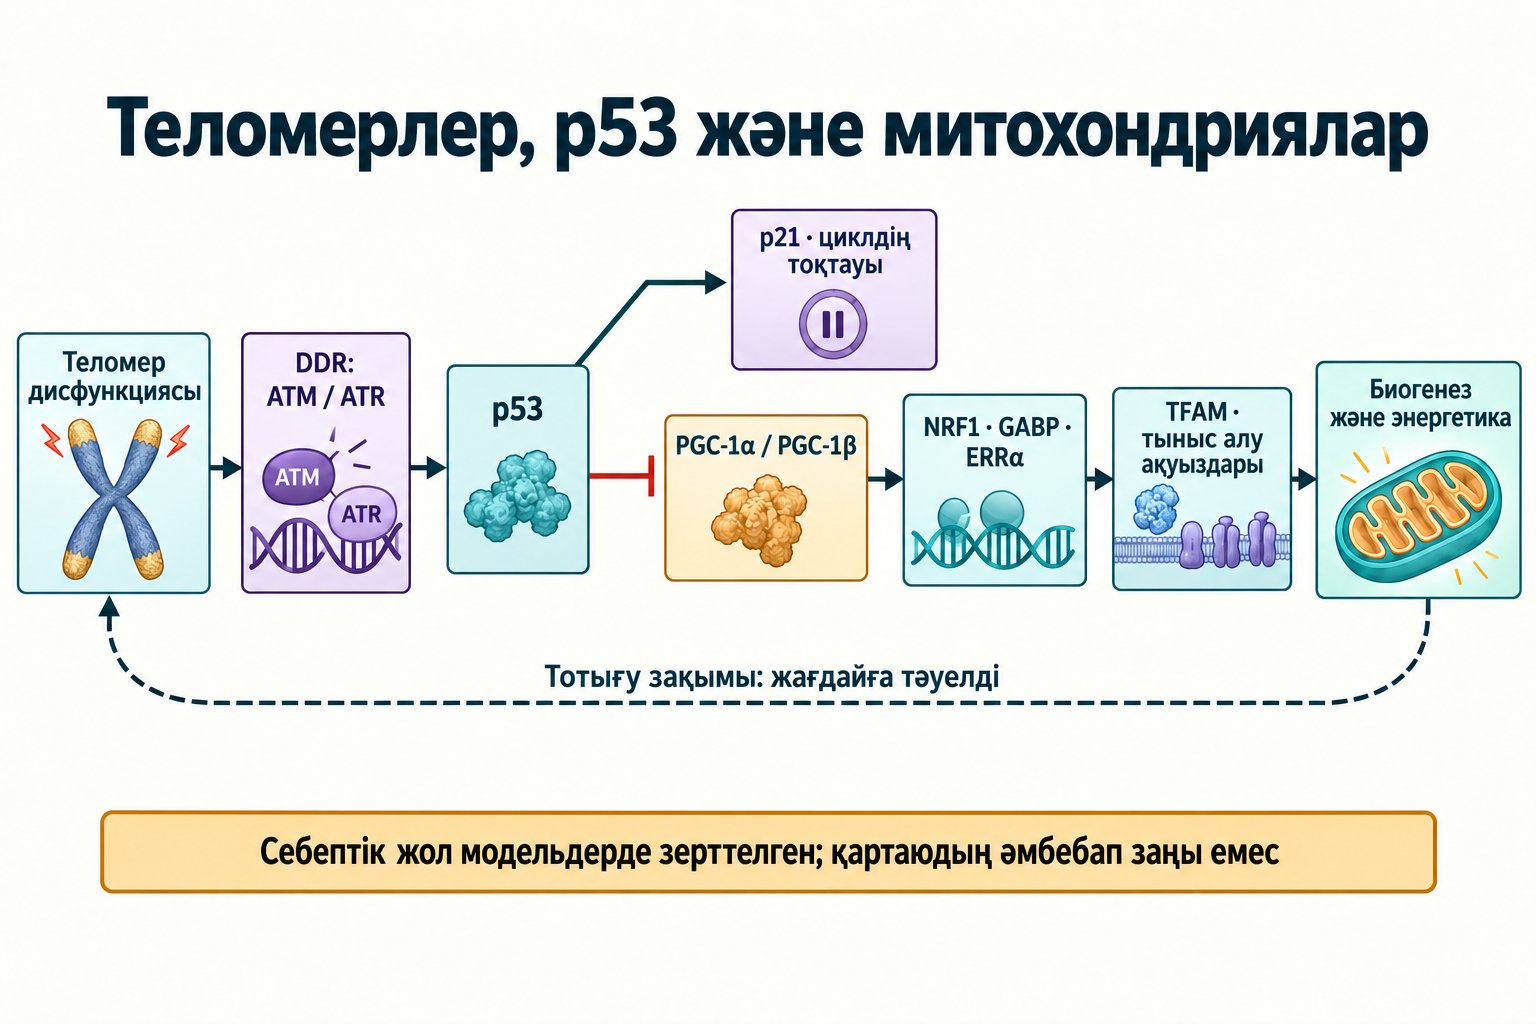
5. Тыныс алу және энергетикалық баланс
Тотығу фосфорлануы екі геномды пайдаланады
Адам mtDNA-сы 13 ақуыз кодтайды: I кешеннің жетеуі, III цитохром b, IV үшеуі және ATP-синтазаның екеуі. Көп компонент ядролық, II түгел ядролық. Екі бағдарлама жинақтау мен жаңаруда үйлесуі керек, сондықтан mtDNA азаюы мен ядролық өзгеріс бірге әсер етеді.
I кешендегі мембраналық ND1/ND4/ND6 ядролық компоненттермен жұмыс істейді. NDUFS3 гидрофильді ядроға, NDUFB8 мембраналық тармаққа жатады; екеуін бірдей перифериялық деу дұрыс емес. III UQCRC2, темір-күкіртті UQCRFS1 және митохондриялық цитохром b-ны қамтиды. IV MT-CO1/MT-CO2-ні COX4 сияқты ядролық ақуыздармен қосады; CuA мен гем a3–CuB қызметтері бөлек.
ATP-синтаза каталитикалық орындары негізінен F1 β-суббірліктерінде, α басқа рөл атқарады. MT-ATP6 протон жолының мембраналық a-суббірлігін кодтайды; c-суббірліктер ядролық ATP5MC гендерінен. MT-ATP8 де митохондриялық. Бір бағдарламаның азаюы барлық компоненттің тікелей жоғалуын не бес кешенде бірдей ақауды білдірмейді.
Суперкешендер, потенциал және тыныс алу бақылауы
I/III/IV I–III₂–IVₙ суперкешендерін құра алады. Ұйымдасу тұрақтылық пен байланысқа әсер етеді, бірақ бөлек кешендер де қызмет етеді. Субстратты арнамен өткізу және ROS шектеуі зерттелуде. Барлық электрон бір жабық арнамен міндетті өтпейді, ыдырау барлық жағдайда бірдей күрт ағуды туғызбайды.
Мембранааралық кеңістіктен матрикске енетін протон үшін Δψ — матрикстің ішкі мембрана сыртқы бетіне қатысты потенциалы, ΔpH — матрикс pH-ы мен сыртқы pH айырмасы:
Теріс электр үлесі мен сілтілі матрикс әдетте енуді қолдайды. Деполяризация тыныс алу қуаты, ажырау, ион өткізгіштігі немесе олардың қосындысын көрсетуі мүмкін. Бір потенциал себепті ажыратпайды. Классикалық RCR:
State 3 ADP-мен ынталанған тыныс алу; state 4 ADP жұмсалғаннан кейінгі күй сияқты протоколмен нақтыланады. Субстрат, оқшаулау сапасы және тыныштық жасау тәсілі қатынасқа әсер етеді. Төмен RCR бір себепті немесе әмбебап клиникалық шекті белгілемейді.
ATP, аденилаткиназа және энергетикалық заряд
Фосфорлану ақауы ATP-ты азайтады, бірақ жасуша тұтынуды өзгертіп, гликолизді күшейтіп, субстратты қайта бөле алады. Жұмыс істейтін бұлшықет, тыныш фибробласт пен бауыр резервтері бөлек. Жалпы ATP синтез ағынын немесе жергілікті энергияны алмастырмайды.
Аденилаткиназа реакциясы:
Аденилаттың энергетикалық заряды AEC құрамды нормалайды:
Теріс емес концентрацияда AEC 0 мен 1 арасында. AMP/ADP өсуі AMPK арқылы да энергетикалық кернеуді білдіреді, бірақ бүкіл пул мөлшерін көрсетпейді. Лактат гликолиз не редокс өзгерісінен өседі, теломерге тән емес. Модельдегі ауыр ATP тапшылығы қысқа теломерлі әр адамда жүйелік лактат ацидозы болады деген сөз емес.
Антиоксидант ферменттер таралған желі құрады
PGC бағдарламалары антиоксидант экспрессиясын қолдайды; St-Pierre 2006 оны тәжірибелік стресс жүйелерінде көрсетті. SOD2, глутатионпероксидазалар, PRDX3/PRDX5 FOXO, NFE2L2 және ұлпалық факторлармен де реттеледі. Каталаза көбіне пероксисомада, барлық жасушаның негізгі матрикс ферменті емес.
Митохондриялық SOD2 супероксидті сутек пероксидіне айналдырады; оны кейін жою керек:
Қорғаныс глутатион, тиоредоксин және NADPH сияқты тотықсыздандыру эквиваленттерін қалпына келтіруді қажет етеді. Бір ферментті көбейту бүкіл желіні жақсартпайды: пероксид түзілуі, жойылуы және орны маңызды. PGC азаюы барлық антиоксидантты жоймайды.
ROS көздері тыныс алу күйіне тәуелді
I және III орындары электронды оттекке бере алады. Үлес тотықсыздану, субстрат, потенциал, ағын бағыты және ингибиторға тәуелді. Жоғары потенциалдағы кері тасымал мен бұзылған тікелей тасымал әртүрлі. Зақымдалған митохондрия барлық жағдайда көбірек ROS шығармайды; ағынның күрт кемуі кей көзді азайтады.
Таңдалған семихинон күйлерінің теңестірілген реакциялары:
Бұл фермент микрокүйлерінің бірдей протондануын білдірмейтін жеңілдетілген жазба. Қолжетімді темір болса, Фентон реакциясы жүреді:
Супероксид NO-мен пероксинитрит түзеді. Ақуыз, липид пен ДНҚ тотығуы және нитрленуі жергілікті химияға тәуелді. Гидроксил радикалы туған орнына жақын әрекет етеді; матрикстен бүкіл жасушаны өтіп теломерге саяхаттайды деу қате.
6. Теломер тотығуы және кері байланыс
Гуанин осалдығы бүкіл геномның найзағай тартқышы емес
Гуанин салыстырмалы жағдайда басқа канондық негіздерден жеңіл тотығады. Көршілес гуаниндер ДНҚ ішіндегі зақым таралуы мен заряд тасымалына әсер етеді. Бірақ тотығу потенциалы ортаға, өлшеу әдісіне және молекулалық айналаға тәуелді. Оны газ фазасының иондану потенциалы деп атап, барлық тотығу эквиваленттері теломерге міндетті ауысады деуге болмайды.
TTAGGG теломерді тотығуды зерттейтін маңызды субстрат етеді. Репликация, ДНҚ пішіні мен ақуыз контактілері де осалдықты анықтайды. Сутек пероксиді компартменттер арасында сигнал тасымалдай алады, бірақ жойылу мен жергілікті реакциялар жолын шектейді. Ядро зақымы митохондрия ROS мөлшеріне ғана емес, осы процестерге тәуелді.
8-oxoG және TRF байланысы: зақым қысқарудан ерте болуы мүмкін
8-Оксогуанин 8-oxoG — зақымдалған негіз; 8-оксо-2′-дезоксигуанозин 8-oxodG — сәйкес нуклеозид. Ұқсас атаулар химиялық бірдей емес. Конформация мен жұптасу көшіру дәлдігіне, соның ішінде адениннің қате енгізілуіне әсер етеді. Әр тотығу бүкіл ДНҚ-ны бір syn күйге міндетті ауыстырмайды.
Opresko 2005 теломер субстратының зақымы TRF1/TRF2 байланысына in vitro қалай әсер ететінін зерттеді. Әсер зақым орны, тығыздығы және конструкцияға тәуелді. Ол тірі жасушада shelterin-нің 90%-ы бірден ығысады немесе әр T-ілмек ашылады деген дәлел емес. Зақым репликацияны тоқтатып, ұзындық айқын азаймай тұрып DDR тудыруы мүмкін; екі көрсеткішті бөлек қарастыру қажет.
OGG1 және BER теломерде де жұмыс істейді
OGG1 8-oxoG-ні негізді эксцизиялық жөндеу BER арқылы танып, алып тастайды. Кейін AP орны өңделіп, аралық толтырылып, ДНҚ біріктіріледі. Қысқа жамау жолында APE1, полимераза β, XRCC1 және лигаза қатысады, баламаларда құрам бөлек. Теломер ортасы қолжетімділік пен аяқталуға әсер етеді, бірақ OGG1 онда мүлде жұмыс істей алмайды деу негізсіз.
G-квадруплекс, ақуыз, хроматин және репликация жеке сатыларды өзгертеді. BER аралық AP орны мен бір тізбекті үзіліс өңдеу үйлеспесе репликациялық стресс тудыра алады. Тұрақты DDR негіз репарациясы жоқтығын дәлелдемейді. Баяулау шамасы мен сақталу мерзімі нақты тәжірибеге қатысты; барлық теломерде міндетті апталық зақым деп айтылмайды.
Ықтимал күшею ілмегі әмбебап қартаю заңы емес
Мүмкін байланыс сызбасы:
Кей жағдайда энергетикалық және қорғаныс функцияларының әлсіреуі тотығу зақымын күшейтіп, теломерге қайта әсер етеді. PGC жебесі қалыпты қолдауды, тежеу белгісі p53 репрессиясын көрсетеді. Бағыт пен мөлшер ұлпаға, субстратқа, жөндеу мен компенсацияға тәуелді.
Сызба тәжірибені жоспарлауға көмектеседі: әр ланкаға араласып, болжанған нәтиже өзгерісін өлшеуге болады. Ол барлық қартайған жасуша бір айналымнан өтетінін немесе әр жасқа қатысты тәуекелдің экспоненталық өсуін түсіндірмейді. Митохондрия зақымы тәуелсіз басталып, DDR қабыну, жасуша жоғалуы және регенерация арқылы да әсер етеді.
7. Ұлпалардың салдары әртүрлі
Жүрек: энергия резерві және кальций циклі
Кардиомиоцитке жиырылу, ион сорғылары мен кальций циклін қалпына келтіру үшін ATP үнемі қажет. Май, көмірсу және басқа субстратты қолдану жүктеме мен ағза күйіне қарай өзгереді. PGC ақауы икемділік пен тыныс алу резервін шектейді. Энергия аздығы SERCA2a/ATP2A2 және басқа ATP процестерін әлсіретеді, бірақ жүрек ақауы бір сорғыдан тұрмайды.
Кальций артық жүктемесі, тотығу және митохондрия өткізгіштігі зақымды күшейте алады. Cyclophilin D өткізгіштік ауысуының сезімталдығын, BAX/BAK сыртқы мембрананың басқа өлім процестерін реттейді; бұл барлық апоптоздың бір міндетті тізбегі емес. Модель осалдықты көрсетеді, әр науқасқа тұрақты шығарылу фракциясы не сөзсіз кардиомиопатия болжамын бермейді.
Бұлшықет: талшық, протеостаз және сателлит жасушасы
PGC-1α тотығу бағдарламасы мен жаттығуға бейімделуді қолдайды. CKM креатинкиназасы және фосфокреатин сұранысты буферлейді. Энергия ақауы ақуыз сапасы мен синтез-ыдырау балансын өзгерте алады. FOXO, MuRF1/TRIM63, atrogin-1/FBXO32 кей атрофия модельдеріне қатысады, тек қысқа теломерден туындамайды.
Адам саркопениясы I талшықтың әмбебап таңдамалы жоғалуы емес. Бұлшықет, иннервация, белсенділік пен ауру үлгіні өзгертеді; көп жағдайда II талшық осалдығы маңызды. PAX7-мен сипатталатын сателлит жасушалары жөндеуге көмектеседі; олардың ақауы жетілген талшықтан басқа уақытта дамиды. Биогенез зақымдалған митохондрияны жоюмен үйлесуі керек; PINK1/Parkin митофагиясы жалғыз жаңару жүйесі емес.
Бауыр: май тотығуы мен глюкоза түзілуі
Бауырда PGC митохондрияны және глюкоза реттелуін қолдайды. PPARα, CPT1A, β-тотығу май қышқылын пайдалануға, HNF4A/FOXO1 коактиваторлары PCK1/G6PC және глюконеогенезге қатысады. Sahin бағдарлама өзгерісін ашығу жауабы және глюкоза өндірумен байланыстырды.
Липид жинағы, диацилглицерол, церамид, инсулинге төзімділік пен қабыну митохондрия ақауына тоғысады. Бірақ «қысқа теломер–стеатогепатит–гипогликемиялық кома» міндетті емес. Стеатоз, фиброз және метаболизмдік аурудың себептері көп, кей диабетте глюконеогенез артық. Ұлпа PGC-ге араласудың мағынасын өзгертеді.
Қан түзілуі және нейралдық ізашарлар
Қан түзуші бағаналы жасуша тыныштық, геном қорғанысы және жаңару қабілетін біріктіреді. Ұзақ DDR бөлінуді шектеп, өлім не функция өзгерісін тудыруы мүмкін, әсіресе теломер синдромында. Метаболизм мен ниша күрделілік қосады: сан, репопуляция және транскрипциялық бейін бөлек өлшенеді.
Тышқанда SVZ субвентрикулярлық және SGZ субгранулярлық аймақтары SOX2, Nestin, DCX сияқты маркерлермен зерттеледі; олар бөлек күйлерді көрсетеді. Нейралдық не глиялық белгінің қалпына келуі адам нейрогенезі, жады немесе барлық байланысты қайтарады деген уәде емес. Түр, аймақ және жас SVZ пен иіс жолы нәтижесін көшіруде маңызды.
8. Теломеразаны қайта іске қосу: қай ақау қайтымды
Jaskelioff TertER/ER жүйесі
Mariela Jaskelioff әріптестері TERT-ті өзгертілген рецептор доменімен қосып, 4-гидрокситамоксифен арқылы реттеді. TertER/ER ұзақ шектелген функцияны қалпына келтіруге мүмкіндік берді. 2010 онлайн және 2011 Nature басылымы бір жұмыс, екі тәуелсіз зерттеу емес.
Кейінгі буындарда арнайы генетикалық құрылымға байланысты айқын дисфункция болды. Бұлар жай қалыпты қарт тышқанға еркін сатылатын өнім берген тәжірибе емес. Жасанды тапшылықты қайтару сол ақаудың салдары мен қайтымдылығын тексереді; барлық табиғи қартаю теломераза тапшылығы екенін немесе адамның 4-гидрокситамоксифен протоколын дәлелдемейді.
Зақым азаюы мен функция қалпына келуі бөлек нәтижелер
Қайта іске қосу теломер зақым белгілерін азайтып, таңдалған функцияларды жақсартты. DDR азаюы p53 тұрақтануын және кей шектеуді әлсірете алады. Бірақ әр мүшеде «барлық TIF жоғалды, барлық p53 жойылды, PGC/TFAM толық қайтты» тізбегі өлшенді деп қабылдауға болмайды.
Jaskelioff индукциялық тін қалпына келуін, Sahin бөлек p53–PGC және митохондрия әсерін зерттейді. Олар үйлесімді биологияны қолдайды, тұтас бір толық дәлелденген жол құру қосымша тәжірибе қажет етеді. Регенерация жақсаруы әр промотордың HDAC арқылы міндетті қайта белсенуін дәлелдемейді.
Жартылай қайтымдылық және ісіктен қорғану
Ішек, көкбауыр, аталық без және жүйке жүйесінің кей ізашар, миелиндену, иіс функциясы жақсарғаны талқыланды. Бірнеше апта созылмалы ақаудың кей салдары қайтымды екенін көрсетті. Бұл күшті механизмдік нәтиже, әр фиброз, мутация, ісік клоны не жас өзгерісі жойылды деген сөз емес.
Реостат метафорасы реттелетін байланысты сипаттайды, ағза жасын бір тұтқамен кері бұруды дәлелдемейді. Теломераза қалыпты ізашар мен көптеген ісік жасушаларын да бөліндіреді. p53 зақымдалған жасушаны шектеп, ісіктен қорғайды. Оны генетикалық жою арқылы механизм тексеру қауіпсіз жасарту стратегиясы болмайды.
9. Адам: теломер аурулары және маркер шектері
Тұқым қуалайтын теломер бұзылыстары
Туа біткен дискератоз және кең спектр DKC1, TERC, TERT, TINF2 және басқа гендермен байланысты. DKC1 H/ACA рибонуклеопротеиндері мен теломераза РНҚ тұрақтылығын, басқа РНҚ процестерін қолдайды. NOP10, NHP2, WRAP53/TCAB1 жиналу мен орналасуға, RTEL1/PARN басқа механизмге қатысады. Әр вариант бір ферменттік қадамның бірдей ақауы емес.
Тырнақ дистрофиясы, тері пигментациясы және шырышты лейкоплакия үштігі әр науқаста жоқ әрі спектрді толық қамтымайды. Хойераал–Хрейдарссон даму, мишық гипоплазиясы, иммундық және қан түзу өзгерістерін, Ревес торлы қабық патологиясын қамти алады. Coats plus CST құрамдастары CTC1 мен күрделі репликациялық қызметке байланысты. Оларды бір нутригенетикалық түсінікке біріктіруге болмайды.
Патогендік ген варианттары отбасылық өкпе фиброзы, сүйек кемігі және бауыр ауруында да табылады. Жиілік отбасы таңдауы, фенотип және гендерге тәуелді. Өкпе сериясының пайызын бүкіл циррозға немесе барлық жасқа қатысты мүше ақауына көшіру дұрыс емес.
Митохондриялық эндофенотип диагноз емес
Жасуша моделінде тыныс алу, mtDNA көшірмесі, потенциал, метаболит және тотығу зақымы зерттеледі. Қосынды механизмді түсіндіреді, бірақ әр науқаста бірдей болуы міндетті емес. Лактат, 8-oxodG және фибробласт тыныс алуы теломер ауруына тән тест емес.
qPCR, терминалдық рестрикция фрагменттері, FISH және жеке қысқа теломер әдістері бөлек қасиет өлшейді. Клиникалық Flow-FISH арнайы зертханада жасқа қатысты таралым және лейкоцит популяцияларын қолданады. Бір әдістің шегін екіншісіне механикалық көшіруге болмайды. Өте қысқа теломер сәйкес фенотипте гипотезаны қолдайды, бірақ «3 кб-дан төмен — бір диагноз және бір ем» әмбебап ереже емес.
SNP қоректік курс тағайындамайды
TERT rs2853669 ETS байланысы және ісіктік промотор өзгерістері тұрғысынан зерттеледі. Әсер генетикалық және ұлпалық ортаға тәуелді; әр тасымалдаушыға бір тұрақты төмендеу не қоспа сызбасын бермейді. Жиі полиморфизм анық тұқым қуалайтын синдромның патогендік вариантынан бөлек.
PPARGC1A rs8192678 Gly482Ser, Gly480Ser емес. Ling адам ұйқыбез аралшықтарын зерттеді және генетика мен эпигенетиканың экспрессия және инсулин секрециясына үлесін бағалады. Ол барлық ұлпа мен популяцияға бір функционалдық әсер бермейді. SNP ассоциациясы NMN, NR немесе антиоксидант дозасын есептемейді.
Қосалқы ауру, қабыну және бөлек сағаттар
Бақылау зерттеулері қысқа лейкоцит теломерін кей жүрек-тамыр және метаболизмдік күймен байланыстырады. Темекі, қабыну, қан құрамы, жас, әлеуметтік және метаболизмдік факторлар түсіндіруге әсер етеді. Генетика мен сирек синдром себептілікті тексеруге көмектеседі, бірақ әр ауру мен ісік тәуекелінің байланыс бағыты бөлек. Ұзын әрқашан жақсы емес.
PGC рөлі бұлшықет, бауыр және β-жасушада өзгеше. Бір ұлпаның әлсіз тотығуы басқа ұлпада глюкоза өндіруді сөзсіз күшейтуді негіздемейді. Созылмалы обструкциялық өкпе ауруында базалық және II альвеолалық жасушалар темекі, қабыну және жаңарумен байланысады. Микроглия, SASP, IL-6, TNF, IL-1 басқа жүйке жолдарына тоғысады, Альцгеймер не Паркинсонның жалғыз себебін бермейді.
Horvath, Hannum, PhenoAge, GrimAge метилденуді пайдаланып, бөлек мақсаттарға үйретілген; теломер ұзындығын тікелей өлшемейді. SAM мен энергияның эпигенетикамен байланысы мүмкін, бірақ бір ATP–сағат жолын дәлелдемейді. Теломер тесті, эпигенетикалық жас және функцияның айырмасы күтіледі, контекстпен түсіндіріледі.
10. Тәжірибелік араласу: нысана, өлшем және нәтиже
TA-65 және циклоастрагенол: маркер жасарту емес
Циклоастрагенол мен TA-65 ықтимал теломераза модуляторы ретінде қаралады. MAPK/ERK, Sp1, c-Myc тәжірибелік жауапқа қатыса алады; құрам, экспозиция мен жасуша әсерді өзгертеді. Жануар фармакокинетикасы адамның әмбебап биожетімділігі емес.
Harley 2011 көп компонентті бақылау бағдарламасын сипаттайды. Одан Salvador 2016 рандомизацияланған жұмысы бөлек: 53–87 жастағы CMV-оң 117 адам, 97-сі бір жылды аяқтады. PBMC теломер көрсеткіші FISH арқылы өлшенді; төмен доза сигналы жоғары дозаның тұрақсыз нәтижесінен ерекшеленді. Барлық ұлпаның p53–PGC қалпына келуі, ұзақ өмір немесе клиникалық ауру азаюы дәлелденбеді.
Бір жылдағы таңдалған зертханалық қауіпсіздік маркерлері өзгермеуі бүкіл популяцияға ұзақ онкологиялық қауіпсіздік бермейді. Көп ісік теломеразаны, бір бөлігі ALT-ты қолданады. Бұл контексті зерттеуге негіз, әр активатор ісік туғызады деген дәлел де емес. Ерікті 8–12 апталық цикл мен арнайы емес онкомаркер тексеруі тексерілген профилактика құрмайды.
NAD⁺, NMN, NR және сиртуин: белсенділік пен мөлшер бөлек
NAD⁺ редоксқа қатысып, сиртуин мен басқа ферментке субстрат болады. NMN/NR пулды толықтырады; сіңу, жасушадан тыс өңдеу және айналу ұлпа мен енгізуге тәуелді. SLC12A8 кей модельде NMN тасымалдаушысы ретінде ұсынылған, бірақ адамда ауыздан түсуінің жалғыз орныққан түсіндірмесі емес. NR тасымалы және NR-киназа фосфорлануы да маңызды, қолжетімді форма метаболизмде өзгереді.
SIRT1 PGC-1α және басқа ақуыз ацетилденуін, SIRT3 SOD2 мен кей митохондрия метаболизмін өзгертеді. Бар ақуызды деацетилдеу DDR тежеген PPARGC1A транскрипциясын қайтармайды. NAD⁺ өсуі p53-ті айналып өтуді, барлық TIF жоюды немесе теломер ұзартуды кепілдемейді. Gomes 2013 сияқты жасуша-тышқан нәтижесі адамның әмбебап қартаюға қарсы дозасын анықтамайды.
AMPK, метформин және AICAR
AMPK нуклеотид, белсендіру ілмегінің фосфорлануы және LKB1 тәрізді реттегішті біріктіреді. Ол PGC-1α, субстрат және энергияға әсер етеді. Тікелей PGC модификациясы, SIRT1, HDAC4/5–MEF2 кей жүйеде қатысады, барлық ұлпаның жалғыз міндетті жолы емес.
Метформин энергия мен редоксты өзгертеді; I кешен тежелуі кей жағдайда концентрация, жинақталу және модельге тәуелді. Лизосомалық сигналдар да зерттеледі. AICAR көбіне AMP аналогы ZMP-ке айналатын AICA-рибозидті білдіреді, тікелей әмбебап қартаю өшіргіші емес. ACC1/ACC2, малонил-CoA, CPT1 май пайдалануды байланыстырады, жүйелік нәтиже ұлпаға тәуелді. Механизм тек теломер ұзындығына қарап дәрі тағайындауды негіздемейді.
MitoQ, астаксантин және R-ALA
MitoQ липофильді трифенилфосфоний TPP⁺ мен хинон бөлігін біріктіреді. Теріс матрикс жинақталуды қолдайды. Еркін бір валентті катионның идеал тепе-теңдігі үшін:
37 °C-та он есе қатынас шамамен 61,5 мВ-қа сәйкес. −180 мВ идеал 10³ шамасын береді, бірақ ұлпадағы нақты дәрі концентрациясын кепілдемейді: липидке бөлу, байланыс, жеткізу және тепе-тең еместік маңызды. Деполяризация қозғаушы күшті азайтады. Митохинол кей реакцияға әсер етеді, барлық SOD2 не теломер процесін алмастырмайды.
Астаксантин липид ортасымен әрекеттеседі; орналасу мен әсер мембранаға және экспозицияға тәуелді. Бұл ауыздан қабылдаудың әр теломерді қорғауын дәлелдемейді. R-α-липой қышқылы липоил реакциясы мен редоксты байланыстырады, бірақ ферментке ковалентті байланысқан кофактор мен еркін қоспа бөлек күй. NFE2L2/NRF2 биогенез GABP/NRF-2-сінен ажыратылады.
Салыстыру және өлшеу таңдау
Ықтимал нысаналарды қосу синергияны дәлелдемейді. Компонент пен қосындыны бір дизайнда салыстырып, экспозицияны өлшеп, уыттылық не жасуша құрамының әсерін алып тастау қажет. Таңғы NAD ізашары, кешкі антиоксидант кестесі мен сызбадан алынған дозалар контурды түзетудің тексерілген жолы емес. Кесте механизм мен дәлелденген нәтижені ажыратады.
| Араласу | Ұсынылған нысана | Зерттелетін өлшем | Негізгі шек |
|---|---|---|---|
| TA-65 / циклоастрагенол | Теломераза мен жасушалық сигнал | Белсенділік, ұзындық таралымы, жасуша қасиеті | Маркер ұзақ өмір мен ұзақ қауіпсіздікті дәлелдемейді |
| NMN / NR | NAD⁺ және тәуелді фермент | Пул, метаболизм, ацетилдену, ұлпа функциясы | Әр p53-тежелген генді автоматты қайтармайды |
| Метформин / AICAR | Энергия сигналы және AMPK | Ағын, AMPK, субстрат және функция | Экспозиция мен клиниканы ұзындықтан шығармайды |
| MitoQ | Потенциалға тәуелді хинон жеткізу | Жинақ, редокс, тыныс алу, зақым | Жеткізу потенциалға тәуелді; теломер клиникалық пайдасы бөлек дәлелденбеген |
| Астаксантин | Липид орта және кей тотығу | Экспозиция, мембрана, нақты нәтиже | Мембрана механизмі нысаналы теломер қорғанысы емес |
| R-ALA | Липоил және редокс | Химиялық формасы анық метаболизм көрсеткіші | Еркін қоспа фермент кофакторына тең емес |
Ұзындық пен зақым mtDNA көшірмесі, тыныс алу және жалпы ATP-тан бөлек бағаланады. Қан/зәр 8-oxodG әртүрлі көз бен өңдеуді көрсетеді, әр теломердің жүктемесін емес. Лактат/пируват алу жағдайын бақылау керек; цитокин мен SASP арнайы емес. Клиникалық пайда бір суррогат өзгерісінен емес, функционалдық және клиникалық нәтижеден көрінеді.
11. Модель себептілігін оқу
Теломер ұшы DDR/p53 және PGC арқылы геномды метаболизммен байланыстырады. Shelterin, репликация, BER, редокс және ұлпа жаңаруы әрекеттеседі, бір ланка барлық қартаюды сипаттамайды. Бастапқы ақау, ұлпа, араласу және нақты өлшем анықталуы керек.
Ұзарту, DDR азаюы, PGC және функция қалпына келуі бөлек нәтижелер; олар сәйкес те, бөлек те болуы мүмкін. Генетикалық модель механизмді тексереді, адам бақылауы аралас фактор мен популяция айырмасын ескереді. Мақала әмбебап дәрі не қоспа курсын бермей, механизм мен шектерді түсіндіреді.
Әдістемелік ескерту. Берілген ғылыми мәтін тақырыптар, химиялық-энергетикалық модельдер және кесте сақталып қайта жазылды. Sahin қайшылықтары, Jaskelioff моделі, PDB, Gly482Ser және TA-65 дизайны нысаналы тексерілді. GABP/NFE2L2, ATP-суббірлік және BER туралы қатаң тұжырымдар түзетілді. Бұл жүйелі шолу не барлық библиографияның толық қайта аудиті емес. Кей алғашқы бет толық оқылмады; бос жер сан, тиімділік не қауіпсіздік болжамымен толтырылмады. Суреттер атомдық құрылым немесе әмбебап қартаю тізбегі емес, ұғымдық сызба.
Жиі қойылатын сұрақтар
Теломер ұзындығы мен қорғанысы бір ме?
Жоқ. Shelterin жоғалуы немесе зақым қысқармай-ақ DDR туғызады. Орташа ұзындық әр ұшты көрсетпейді.
Митохондрия үшін p53-ті өшіруге бола ма?
Генетикалық жою механизмді тексереді, бірақ p53 ісіктен қорғайды және бейімделуге қатысады. Тәжірибе емдік өшіруді негіздемейді.
Реактивация адам жасаруын дәлелдей ме?
Жоқ. Jaskelioff арнайы тапшылық тышқан генотипін зерттеді. Жартылай қайтымдылық әмбебап адам механизмі не пайдасы емес.
Тестпен TA-65, NMN, MitoQ таңдауға бола ма?
Бұл жұмыстар мұндай курсты тексермеген. Экспозиция, маркер, функция мен клиника бөлек; ұзындық жеткіліксіз.
Дереккөздер
- Hayflick L, Moorhead PS. The serial cultivation of human diploid cell strains. Exp Cell Res. 1961;25(3):585-621.
- Watson JD. Origin of concatemeric T7 DNA. Nat New Biol. 1972;239(94):197-201.
- Olovnikov AM. A theory of marginotomy. The incomplete copying of template margin in enzymic synthesis of polynucleotides and biological significance of the phenomenon. J Theor Biol. 1973;41(1):181-190.
- Griffith JD, Comeau L, Rosenfield S, Stansel RM, Bianchi A, Moss H, de Lange T. Mammalian telomeres end in a large duplex loop. Cell. 1999;97(4):503-514.
- de Lange T. Shelterin: the protein complex that shapes and safeguards human telomeres. Genes Dev. 2005;19(18):2100-2110.