R-ALA, липоамид және пируватдегидрогеназа: дәлелденгені не — NutriFit
R-альфа-липой қышқылы: PDC липоамиді, редокс-химия және клиникалық деректердің шектері
Митохондриялық липойлану мен пируватдегидрогеназаның каталитикалық циклі бос тиокт қышқылының фармакологиясынан бөлек қарастырылады; нейропатия зерттеулері, экспозиция және қауіпсіздік.
Липой қышқылы адам биохимиясында бір-бірінен түбегейлі ерекшеленетін екі күйде кездеседі. Митохондрия ішінде R-липойл тобы көпферментті ақуыздардағы лизин қалдықтарына ковалентті байланысып, аралық субстраттарды олардың белсенді орталықтары арасында тасымалдайды. Ішке қабылданатын альфа-липой қышқылы — бос R-энантиомер немесе R/S рацематы — ағзаға сырттан түседі, сіңіріліп, метаболизденеді және негізінен фармакологиялық әсер ретінде зерттелген. Осы екі күйді шатастыру бастапқы материалдағы басты қате: липоамидтің пируватдегидрогеназа кешені (PDH/PDC) үшін міндетті болуы қоспа оның E2 суббірлігін тікелей толықтырады, липойланудың генетикалық ақауын түзетеді немесе пируваттың тотығуына қойылған кез келген шектеуді жояды дегенді білдірмейді.
Кофактордың ашылуынан хиралдық мәселесіне дейін
Липоат бактериялардың өсуін зерттеу кезінде кейбір метаболизм реакцияларына қажет фактор ретінде анықталды; ХХ ғасырдың ортасында затты бөліп алып, құрылымын сипаттау оның дегидрогеназа кешендеріндегі қызметін зерттеуге жол ашты. «Ацетат факторы» және «протоген» деген тарихи атаулар бактерия дақылдарында байқалған құбылыстарды сипаттаған, альфа-липой қышқылын адам дәрумені деп таныған жоқ. Тіндерде негізгі функционалдық қор ақуызбен байланысқан липоамид түрінде болады, сондықтан бос қышқылдың аз мөлшері кофактордың рөлі шамалы екенін көрсетпейді. «Әмбебап антиоксидант» және «антиоксиданттардың антиоксиданты» деген сөздер бос липой қышқылы мен дигидролипой қышқылы жөніндегі тарихи болжамдарға қатысты; оларды ферментке байланысқан липоамидке телімей, қолжетімді концентрациялар мен өлшенген соңғы көрсеткіштер негізінде бағалау керек.
Бос альфа-липой қышқылының формуласы — C8H14O2S2, молярлық массасы шамамен 206,33г/моль. Бес мүшелі 1,2-дитиолан сақинасында дисульфидтік байланыс бар, ал алифатты тізбек карбоксил тобымен аяқталады. Асимметриялы C3 көміртегі R және S энантиомерлерін анықтайды. Митохондриялық биосинтез табиғи R-конфигурацияны түзеді; өнеркәсіпте өндірілген тиокт қышқылы препараттарының көбі рацемат болады. Оптикалық айналу таңбасы еріткішке, температураға және толқын ұзындығына тәуелді, ал R/S конфигурациясы орынбасарлардың басымдығын анықтайтын ережелер бойынша беріледі: эксперимент жағдайын көрсетпей бұл екі белгілеуді теңестіруге болмайды.
Дисульфид сақинасының тотықсыздануы дигидролипой қышқылының (DHLA) екі тиол тобын түзеді:
R−LA+2e−+2H+⇌R−DHLA.
Белсенді орталықтардың стереоселективтілігі энзимология үшін маңызды, бірақ бұл S-форма әрдайым антагонист болады, адамдағы LIPT1-ді тежейді немесе рацематтың клиникалық нәтижесін нашарлатады дегенді білдірмейді. Бастапқы деректегі Km көрсеткішінің үш не бес есе айырмасы, SMVT-тің бәсекелі қанығуы немесе глюкозаның сіңуін тұрақты пайызға азайту туралы мәлімдемелер фермент, субстрат, орта және концентрация көрсетілмей жалпы фармакокинетикалық заңдылыққа айналмайды. Таза R-энантиомер мен рацематтың фармакологиялық әсерін әртүрлі араласулар ретінде салыстырған жөн; S-энантиомердің әр грамын «уытты балласт» деп атауға болмайды.
Бес мүшелі дисульфид сақинасы ашылып, полимерленуі мүмкін; бұл әсіресе таза заттарды өндіру, қыздыру және сақтау кезінде маңызды. Натрий R-липоаты сияқты тұз түрлері бос қышқылдан ерігіштігі мен физикалық тұрақтылығы бойынша ерекшеленеді, ал асқазан-ішек ортасында еру химиялық күйін өзгертеді. Белгілі бір түрдің технологиялық артықшылығын бағалау үшін температураны, ылғалдылықты, қосымша заттар құрамын, сақтау уақытын және аналитикалық әдісті көрсету қажет. Бастапқы кестедегі «абсолют» ерігіштік, бөлме температурасындағы сөзсіз полимерлену, тұрақты Tmax және Cmax-тың еселік артықшылығы туралы тұжырымдар құтыдағы зат тәжірибесін әртүрлі формалардың клиникалық фармакокинетикасымен араластырады; салыстырмалы зерттеусіз бұл сандар R-липоаттың әмбебап қасиеттері емес.
Жасушалар митохондрия ішінде липоамидті қалай құрастырады
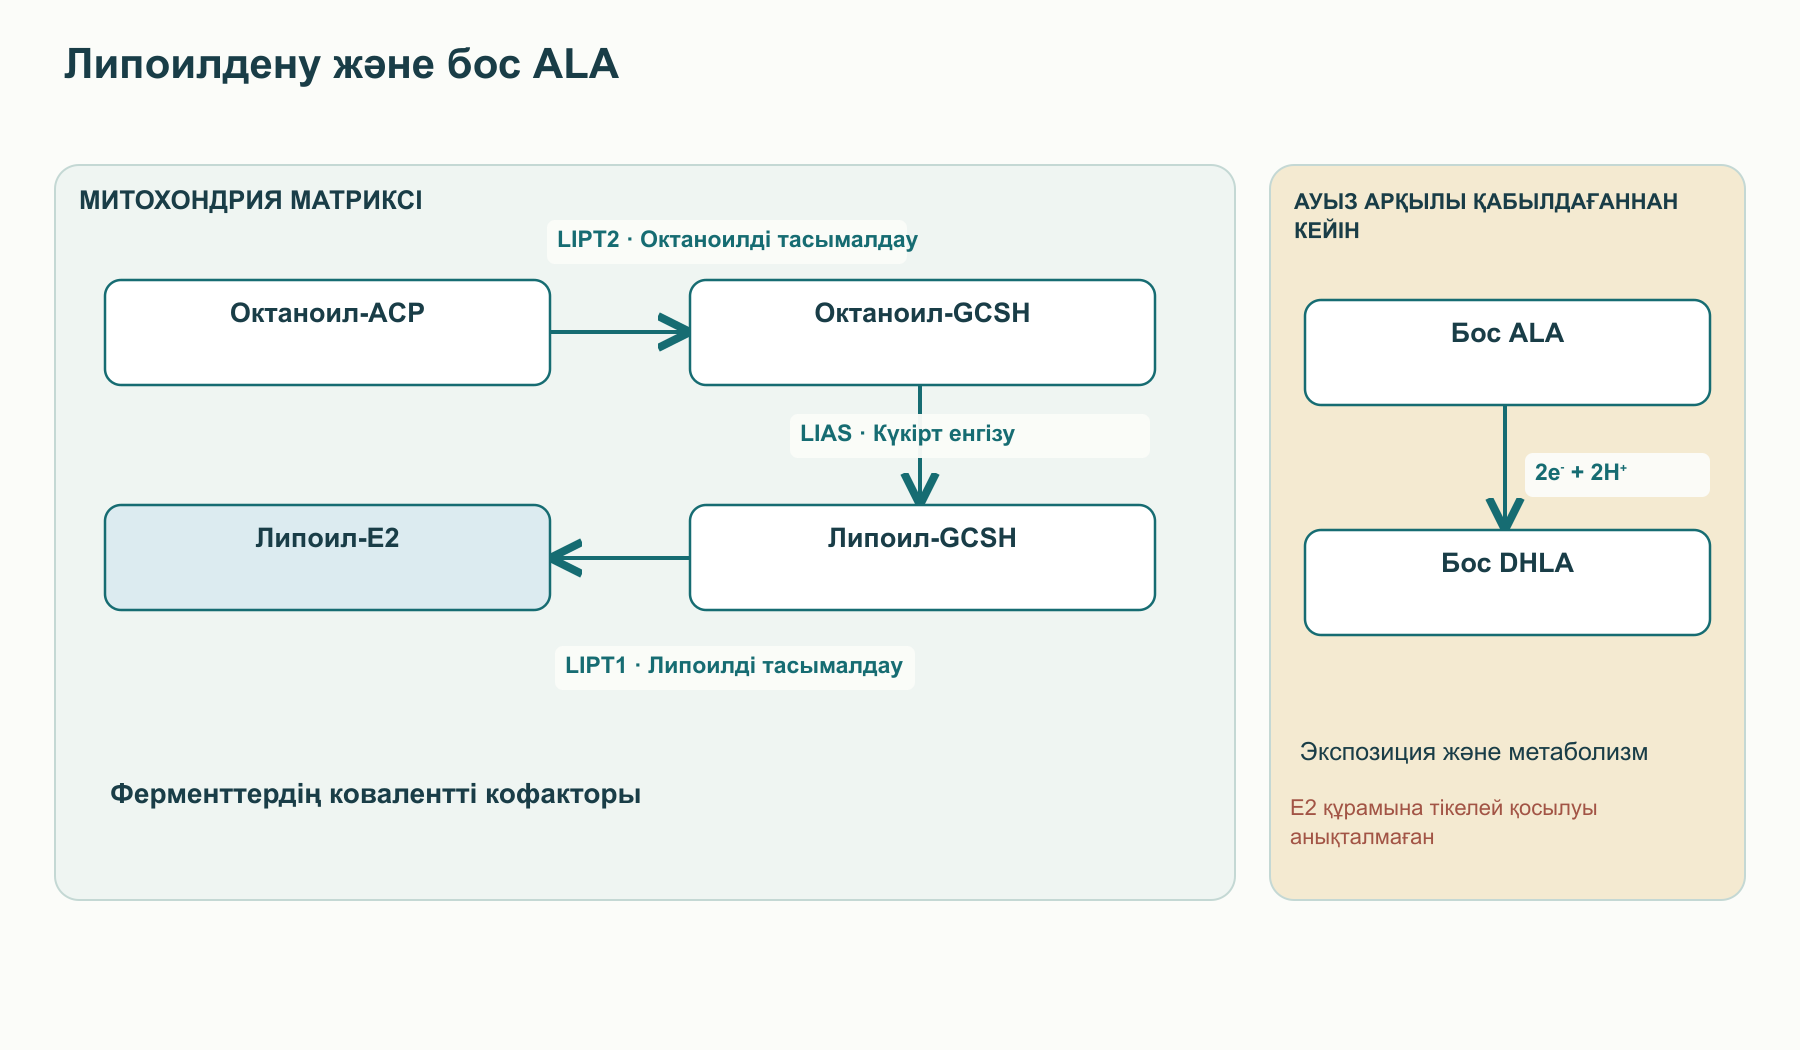
Митохондриядағы II типті май қышқылдарының синтезі ацилтасымалдаушы ақуызбен (octanoyl-ACP) байланысқан октаноил тобын береді. LIPT2 оны глицинді ыдырату жүйесінің H-ақуызындағы белгілі бір лизинге тасымалдап, октаноил-H-ақуыз түзеді. Одан кейін темір-күкірт кластерлері бар radical-SAM тобының ферменті LIAS октаноил тізбегіне күкірт атомдарын енгізіп, дисульфидті дитиолан қаңқасын қалыптастырады. LIPT1 дайын липойл тобын H-ақуыздан дегидрогеназа кешендерінің E2 суббірліктеріне ауыстырады; олардың қатарына PDC кешеніндегі DLAT, α-кетоглутаратдегидрогеназа кешеніндегі DLST және тармақталған α-кетокислоталар дегидрогеназасындағы DBT кіреді. Бұл жол митохондрияда орналасқан әрі Fe–S кластерлерінің жиналуын және ақуыз-акцепторлардың қолжетімді болуын қажет етеді.
LIAS реакциясында S-аденозилметионин ыдыраған кезде түзілетін радикал октаноил қалдығындағы C–H байланыстарын белсендіреді; қосымша кластер күкірт көзі болады. Катализ барысында осы кластер бұзылатындықтан, реакцияның қайта айналымы бос қышқылдың болуына ғана емес, жасушалық жөндеу мен Fe–S жүйесінің биогенезіне де тәуелді. LIAS, LIPT1, LIPT2 және кластер құрастыру ақуыздарының бұзылуы бірнеше ферменттің липойлануы жеткіліксіз болатын ауыр туа біткен метаболизм синдромдарын туғызуы мүмкін. Бұл аурулар эндогендік жолдың өмірлік маңызын көрсетеді; ауыз арқылы қабылданған R-ALA генетикалық бөгетті айналып өтетінін дәлелдемейді. Сүтқоректілер жасушасында бос липоаттың нысана ақуыздарға тікелей қосылуы тиісті salvage-механизмнің бар-жоғына тәуелді, оны бактериялармен ұқсастыққа сүйеніп жорамалдауға болмайды.
Химиялық түрі
Орналасуы
Нақты анықталған қызметі
Әлі ашық тұрған бөлек мәселе
Октаноил-ACP және октаноил-GCSH
Митохондриялық биосинтез
Липойл тобының ізашарлары.
Белгілі бір тіндегі Fe–S кластерлерінің қолжетімділігі мен LIAS белсенділігі.
E2 немесе H-ақуыздың липойллизині
Матрикстегі ақуыз кешені
Аралық топты белсенді орталықтар арасында ковалентті тасымалдау.
Нақты аурудағы липойлану дәрежесі.
Бос R-ALA, S-ALA және DHLA
Енгізілгеннен кейін плазма мен қолжетімді жасушалық компартменттер
Экспозицияға тәуелді фармакологиялық әсер.
Ақуызға қосылуы, қажетті тіндік концентрация және клиникалық әсер.
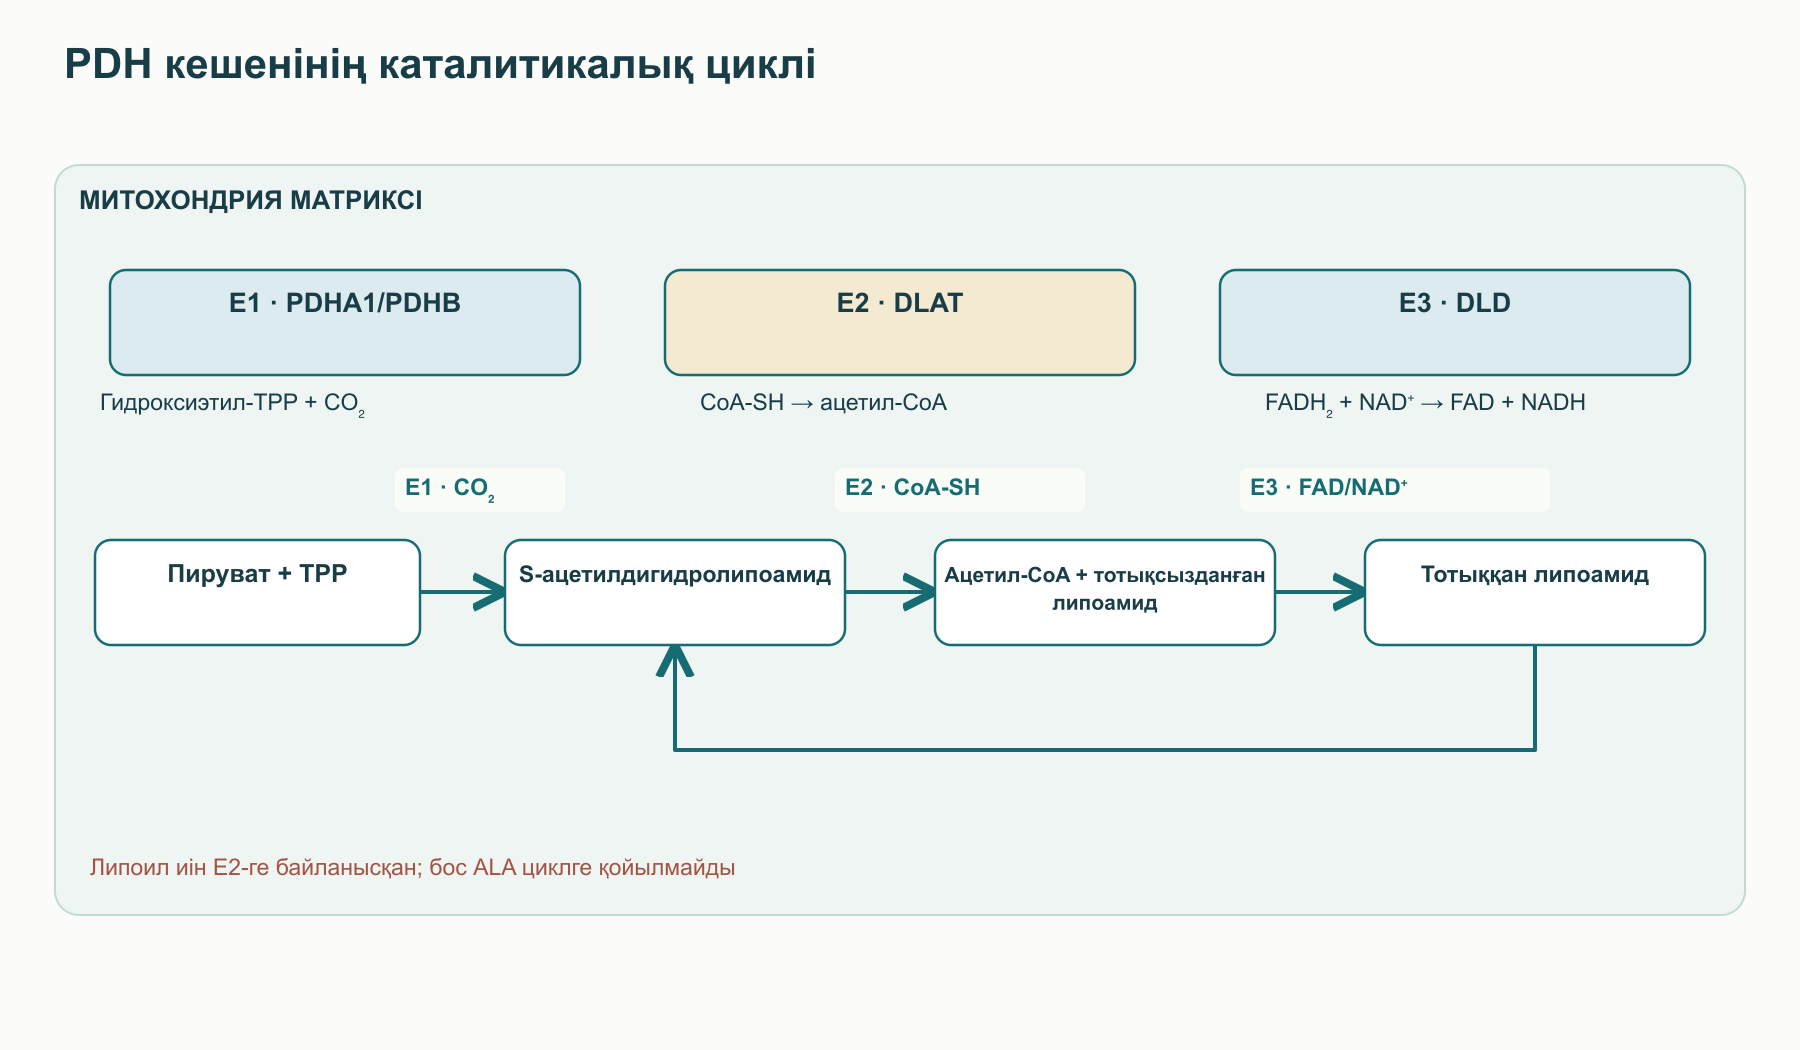
Пируватдегидрогеназа кешені цитозольдік гликолизді митохондрияның үшкарбон қышқылдары циклімен байланыстырады: пируват матрикске өтіп, ацетил-CoA-ға айналады. Кешеннің ұйымдасуы реакцияға қабілетті аралық өнімдердің сулы ортаға жоғалуын азайтады. E1 (пируватдегидрогеназа; адамда PDHA1 және PDHB суббірліктері) Mg²⁺ қатысуымен тиаминпирофосфатты (TPP) байланыстырады; E2 (DLAT) липойл домендерін алып жүреді және ацетилді CoA-ға тасымалдайды; E3 (DLD) байланысқан FAD арқылы NAD⁺-ты тотықсыздандырады. E3BP/PDHX ақуызы E3-тің көпбөлікті E2 өзегіне жалғануына көмектеседі. Препараттағы кешен архитектурасы мен суббірлік көшірмелерінің саны түрге, жиналу күйіне және құрылымдық талдау әдісіне тәуелді; химиялық циклді түсіну үшін «дәл 60 E2 және 30 E1» деген тұрақты үлгі қажет емес.
Липойл тобы ақуыз доменіндегі белгілі бір лизиннің ε-амин тобына амид байланысымен жалғанған. Иілгіш байланыстырғыштар бұл доменнің арасы алшақ E1, E2 және E3 белсенді орталықтарына жетуіне мүмкіндік береді; «тербелмелі иық» деген атау осы геометрияны сипаттайды. Бұл бос R-ALA молекуласы ферменттер арасында өздігінен жүріп өтеді немесе оның концентрациясын жай ғана көтеру дұрыс липойланған әрі қаныққан кешенді жылдамдатады дегенді білдірмейді. Каталитикалық айналым үшін пируват, CoA, NAD⁺, TPP, FAD, жұмыс істейтін ақуыз қаңқасы және қолжетімді липойл домені бір мезгілде қажет.
E1-де TPP карбанионы/илиді пируваттың карбонил көміртегіне шабуылдайды; декарбоксилденуден кейін гидроксиэтил-TPP түзіліп, CO₂ бөлінеді. Ақуызға байланысқан липоамидтің тотыққан дисульфид сақинасы осы аралық өнімнен тотықсыздандырғыш эквиваленттерді қабылдайды, ал гидроксиэтил тобы ацетилге дейін тотығады. S-ацетилдигидролипойл домені түзіліп, ацетил E2-нің каталитикалық бөлігіне жеткізіледі. CoA-SH тиоэфирге шабуыл жасап, ацетил-CoA түзеді де, E2-де тотықсызданған дигидролипоамидті қалдырады. Үшінші кезеңде E3 оның екі SH тобын дисульфидке дейін тотықтырып, тотықсыздандырғыш эквиваленттерді ақуыздық дисульфид жұбы және FAD арқылы NAD⁺-қа береді. Тотықсызданған липойл домені соңғы өнім емес: ол қайта түзіліп, келесі тасымалдауға дайын болады.
Жалпы реакция pyruvate+CoA−SH+NAD+→acetyl−CoA+CO2+NADH+H+ деп жазылады. Бұл теңдеудің өзі тіндегі ағын жылдамдығын көрсетпейді: оған субстраттар, ацетил-CoA өнімі, NADH/NAD⁺ арақатынасы, E1 фосфорлануы, NADH-ты қайта тотықтыруға оттегінің қолжетімділігі және циклдің кейінгі сатылары да әсер етеді. Бастапқы материалда нақты стандартты ΔG∘′ және «иық» ұзындығы митохондрияға ортақ әмбебап шама ретінде берілген; тірі жасушада химиялық потенциал мен кешен конформациясы ортаға байланысты, сондықтан бұл сандарды қоспа дозасына айналдыруға болмайды.
PDC бөлігі
Ақуыз және қажет кофакторлар
Липойл тобының рөлі
Бос ALA автоматты түрде түзетпейтін ағынның төмендеу себебі
E1
PDHA1/PDHB, TPP, Mg²⁺
E1-ден тотыққан ацетил аралық өнімін қабылдайды.
E1 ақауы, TPP тапшылығы, тежегіш фосфорлану.
E2
DLAT, липойллизин, CoA-SH
Ацетилді CoA-ға беріп, дисульфидті дитиолға өзгертеді.
DLAT немесе LIPT1/LIAS бұзылысы, өзек жиналуының ақауы не CoA қолжетімсіздігі.
E3
DLD, FAD, NAD⁺; ұйымдасуға E3BP/PDHX
Дигидролипойл иықшасын қайта тотықтырады.
DLD ақауы, NADH жүктемесінің жоғарылығы немесе E3 байланысуының қиындығы.
Ұқсас химия α-кетоглутаратдегидрогеназа кешенінде (E2: DLST, сукцинил-CoA түзілуі), тармақталған α-кетокислоталар дегидрогеназасында (E2: DBT, лейцин, изолейцин және валин катаболизмі), сондай-ақ 2-оксoadипат дегидрогеназасында қолданылады. Глицинді ыдырату жүйесінде липоамид E2-ге емес, GCSH H-ақуызына байланысқан; ол аминометил тобын P, T және L компоненттері арасында тасымалдап, тетрагидрофолатпен бірге 5,10-метилентетрагидрофолат түзеді. Бұл айырмашылықтар клиникада маңызды: липойланудың төмендеуі бірнеше кешенге қатар әсер етіп, лактат, аминқышқыл және біркөміртекті метаболизм белгілерін туғызуы мүмкін. Дегенмен әрбір тұқым қуалайтын аурудың негізі нақты зақымданған генге байланысты, жалпы «липой қышқылы тапшылығы» деген атауға емес.
Пируваттың кіруін реттеу: PDK, PDP және редокс күйі
Пируваттың тотығуы E1α фосфорлануы арқылы реттеледі. Пируватдегидрогеназа киназасының PDK1–PDK4 изоформалары PDHA1-дің белгілі сериндерін фосфорлап, кешен белсенділігін төмендетеді; пируватдегидрогеназа фосфатазалары PDP1/PDP2 бұл фосфаттарды алып тастайды. Жұмыс істейтін бұлшықетте кальций сигналы PDP-ны белсендіре алады, ал ацетил-CoA мен NADH артық болуы энергетикалық күйді өзгертіп, циклге жаңа көміртек бірліктерінің кіруін шектеуге көмектеседі. Әр изоформа мен фосфорлану орнының үлесі тінге, тамақтануға және жүктемеге қарай өзгереді, сондықтан бастапқы материалдағы «Ser293 PDC-ні толық сөндіреді» деген біржақты формула тым кесімді.
Май қышқылдары қолжетімді болғанда Рэндл циклі тотығу ресурстары үшін бәсекені және субстрат таңдауындағы ауысуды сипаттайды. Цитозольдік лактатдегидрогеназа пируватты лактатқа тотықсыздандырып, гликолизге қажет NAD⁺-ты қатар қайта түзеді: pyruvate+NADH+H+⇌lactate+NAD+. Лактат гипоксиядан, гликолиз ағынының жоғарылауынан, пируватты пайдалану бұзылуынан, дәрілерден немесе бауыр ауруынан көтерілуі мүмкін; ол бос ALA тапшылығының арнайы сынағы емес. R-ALA барлық PDK-ны тікелей тежейді, PDP1-ді белсендіреді және гиперлактатемияны «жояды» деген бастапқы мәлімдеме E2 липойлануымен механистік тұрғыда байланыстырылмаған және клиникалық хаттама бола алмайды. PDC-ге әсерін анықтау үшін PDHA1 фосфорлануын және пируваттан ацетил-CoA-ға изотоп ағынын өлшеп, лактат өзгеруінің басқа себептерін бақылау қажет.
Митохондриядағы ацетил топтарының тасымалы мен ацетил-L-карнитиннің рөлі ацетил-L-карнитин туралы мақалада бөлек қарастырылады. Бұл ацетил метаболизміне қатысты жақын тақырып, бірақ ацетилкарнитин қоры PDH реакциясын және оның ковалентті липоамидін алмастырмайды.
Бос ALA редокс-реагент ретінде: мүмкіндіктері мен шектеулері
Тотыққан циклдік ALA мен тотықсызданған DHLA екі электрон мен екі протонды қабылдап, бере алатын жұп түзеді. Оның стандартты биохимиялық потенциалы анықтамалық жағдайларда беріледі, бірақ тіндегі потенциал тотықсызданған және тотыққан формалардың арақатынасына, pH-қа, ақуызбен байланысуға және компартментке тәуелді. Нернст теңдеуі берілген концентрациялардағы бағытты түсіндіреді; стандартты потенциалдар тізімі енгізілген бос ALA ағзадағы барлық антиоксидантты рет-ретімен тотықсыздандыратынын дәлелдемейді. Электрондардың берілуі субстраттың қолжетімділігіне, реакция жылдамдығына және молекулалардың орналасуына да байланысты.
Дигидролипой қышқылының GSSG дисульфидін тотықсыздандыруы химиялық тұрғыдан мүмкін: DHLA+GSSG→ALA+2GSH. Жасушада GSH-ты тұрақты қайта түзудің негізгі жолы — NADPH пайдаланатын глутатионредуктаза; de novo GSH синтезі глутамат-цистеинлигазаға және цистеиннің түсуіне тәуелді. Аскорбат мембрана шекарасында токофероксил радикалын тотықсыздандыра алады, ал GSH аскорбат қорын сақтауға қатысады. Алайда бастапқы материалдағы «NADPH-сыз тұйық тізбек» дербес жұмыс істейтін дәлелденген жүйе емес: DHLA-ның өзі де тотықсыздандырғыш эквиваленттер есебінен қалпына келуі тиіс, ал қоспадан кейінгі жасушалық концентрациялар метаболизм және шығарылумен шектеледі. Фероптоз туралы деректерді липидтердің асқын тотығуы мен GSH-қа тәуелді жүйелер жөніндегі механистік болжам ретінде түсіну керек, адамда жасуша өлімінің бұл түрі алдын алынатынының дәлелі ретінде емес.
KEAP1–NRF2–ARE жолы электрофильді және тотығу сигналдарының қорғаныш гендерінің транскрипциясын қалай өзгертетінін көрсетеді. Базалық жағдайда KEAP1 CUL3/RBX1-мен бірге NRF2 убиквитинденуіне ықпал етеді; сенсор цистеиндердің қызметі өзгергенде қолжетімді NRF2 шағын Maf ақуыздарымен кешен түзіп, ARE тізбектеріне байланысады. Ықтимал жауаптарға GCLC/GCLM, NQO1, HMOX1 және SLC7A11 тасымалдағышы экспрессиясының өзгеруі жатады, бірақ жауаптың бағыты мен шамасы модельге тәуелді. Бос R-ALA KEAP1-дегі Cys151, Cys273 және Cys288 қалдықтарын тікелей әрі бірдей өзгертеді, KEAP1-ді CUL3-тен ажыратады және GSH-ты бірнеше есе ұзақ көтереді деген бастапқы мәлімдеме нақты тіндегі аддуктілер мен транскрипцияны тікелей зерттеуді қажет етеді. Жасушаларды өңдегеннен кейін NRF2 белсенуі R-ALA-ның аталған қалдықтарға тікелей байланысуынан деп автоматты түрде қорытындылауға болмайды: редокс ортасының өзгеруі мен аралық сигналдар да ықтимал.
Темір мен мыс иондары реактивті бөлшектердің түзілуін катализдей алады. Классикалық Фентон реакциясы Fe2++H2O2→Fe3++OH−+∙OH деп жазылады; темір қатысатын супероксид пен пероксид айналымдары өзара байланысты цикл құрайды. DHLA-ның екі тиол тобы in vitro металдармен кешен түзе алады, бірақ кешен түзілуі Фентон реакциясын қауіпсіз түрде «толық сөндіруге» тең емес. Лигандқа, pH-қа және тотықсыздандырғыштардың қолжетімділігіне қарай хелаттау темірдің редокс белсенділігін өзгертуі мүмкін, ал нақты компартменттегі бос DHLA концентрациясы бөлек мәселе болып қалады. Химиялық байланысу көрсетілгенінен сынап, кадмий мен мышьяк детоксикацияланып, өтпен не несеппен кепілді түрде шығарылады деген қорытынды шықпайды. Улануға күдік болса, қоспаға реакцияны телімей, клиникалық токсикология қажет.
Химиялық және жасушалық жүйелерде ALA/DHLA-ның пероксинитритпен, гипохлоритпен, синглетті оттекпен және радикалдармен әрекеттесуі зерттеледі. Тирозиннің нитрленуі, липопротеиндердің тотығуы және мембраналардың асқын тотығуы осындай тәжірибелерде өлшенеді. Бірақ бұл агенттердің реактивтілігі әртүрлі, ал гидроксил радикалы түзілген жерінің маңында әрекеттеседі: онымен жоғары жылдамдық тұрақтысы қолжетімді концентрацияда биологиялық қорғанысқа кепіл болмайды. Бастапқы мәтіндегі жалғыз 1,4×10⁶M−1s−1 жылдамдығы мен «найзағайдай бейтараптандыру» тіркесі өлшеу жағдайларынсыз әртүрлі реагенттерге телінеді; мұнда олар емдік кинетикалық тұрақтылар ретінде қабылданбайды.
Инсулин сигналы және глюкоза тасымалы
Липоуыттылық пен қабыну кезінде липид метаболиттері, митохондриялық белсенді оттек түрлері және стресс-киназалар инсулин рецепторы мен оның субстраттарының жұмысын өзгертуі мүмкін. PKC-тің кейбір изоформалары, JNK және IKK белсенділігінің артуы эксперименттік модельдерде инсулин жауабының әлсіреуімен байланысты, бірақ IRS1 сериндік фосфорлануы көптеген орындарды, уақыт кезеңдерін және физиологиялық қызметтерді қамтиды. Сондықтан бастапқы материалдағы Ser307, Ser616 және Ser1101 әмбебап «патологиялық қосқыштар» емес, ал тамақтан кейінгі барлық глюкозаның бұлшықетке сіңетін үлесі әдіске, популяцияға және жүктемеге тәуелді. Жасушалық желіде таңдалған орынның фосфорлануы төмендесе де, бұл адамдағы жүйелік инсулинрезистенттілік түзелді дегенді дәлелдемейді.
Инсулин рецепторға байланысқаннан кейін рецептордың тирозинкиназалық белсенділігі IRS ақуыздарының тирозиндік фосфорлануын арттырады; IA класты PI3K реттеуші p85 суббірлігі тиісті фосфотирозин мотивтерін таниды, ал каталитикалық p110 PIP2-ден PIP3 түзеді. PIP3 PH-домендері бар ақуыздарды, соның ішінде PDK1 мен AKT-ны тартады; AKT-ның белсендіру ілмегі мен гидрофобты мотивіндегі фосфорлануы, mTORC2 қатысуымен, келесі сигналды қолдайды. Бұл — жақсы орныққан жол картасы, бірақ картаның өзі экзогендік ALA қай буынға әсер ететінін көрсетпейді. R-ALA инсулин лиганды болмаса да рецептордың автофосфорлануын тікелей туғызады және IRS1-дің нақты қалдықтарын міндетті түрде өзгертеді деген бастапқы мәлімдеме байланысу, доза және инсулиннен тәуелсіздік жөніндегі тікелей бақылауларды қажет етеді; мұндай әсер жалпы редокс-химиядан адамда болады деп қорытылмайды.
Эндоплазмалық тордың цитозольдік жағында орналасқан PTP1B инсулин сигналының компоненттерін дефосфорлайды. Оның каталитикалық Cys215 қалдығы қайтымды тотығуға сезімтал болғандықтан, фермент жергілікті редокс-сигнал нысанасы болуы мүмкін. Бірақ Cys215-тің тотықтырғыштарға сезімтал болуы ішке қабылданатын R-ALA бұлшықеттегі PTP1B-ны таңдамалы әрі толық тежейді дегенді көрсетпейді. Мұны дәлелдеу үшін жетуге болатын экспозицияда ферменттік және жасушалық өлшеулер жүргізіп, ферменттің тікелей өзгеруін пероксид концентрациясының жанама өзгерістерінен ажырату қажет. Бастапқы сипаттамадағы pKa шамалары мен белгілі серин/тирозин орындарының тізімі мұнда әмбебап клиникалық механизм ретінде қолданылмайды.
Фосфорланған AKT Rab ақуыздарының GAP-ы TBC1D4/AS160 реттейді: оның белсенділігі өзгергенде GLUT4 қойма везикулалары миоцит немесе адипоцит мембранасына жылжып, онымен қосыла алады. Бұл аппаратқа Rab, цитоскелет және синтаксин-4 сияқты SNARE ақуыздары қатысады; бұлшықет жиырылғанда қатар жүретін басқа жол AMPK мен TBC1D1-ді қамтиды. Жасушалық және жануарлық модельдерде липой қышқылының глюкоза сіңуіне және GLUT4-ке әсері хабарланған; AKT, AMPK, p38 MAPK және энергетикалық күй өзгерістерінің салыстырмалы үлесі доза мен жүйеге байланысты. Бастапқы мәтін сигнал жолынан инсулин мүлде жоққа жуық кезде немесе рецептор ақаулы болса да глюкоза инсулинсіз жаппай сіңеді деген қорытындыға бірден өтеді. ALA инсулинді алмастырады немесе рецептор ақауын түзетеді деген клиникалық дәлел жоқ.
Клиникалық бағалау: симптом, жүйке қызметі және метаболизмдік нәтиже
Дистальді симметриялық диабеттік полинейропатия ауырсыну мен парестезияларды объективті өлшенетін сезімталдық, қозғалыс және жүйке өткізгіштігінің бұзылуларымен біріктіреді. Оның механизмдеріне созылмалы гипергликемия, жүйке талшықтарының зақымдануы және қантамыр өзгерістері кіреді; жалғыз редокс-механизм аурудың бүкіл ағымын түсіндірмейді. Сондықтан тиокт қышқылын бағалағанда TSS шкаласындағы қысқа мерзімді симптомдық әсерді, неврологиялық тексеріс өзгерісін, жүйке өткізгіштігін және мүгедектікке әкелетін асқынулардың алдын алуды ажырату қажет. Зерттеулерде әртүрлі формалар мен енгізу жолдары, негізінен рацемиялық ALA қолданылды; олардың нәтижелері натрий R-липоатын тікелей бағаламайды.
ALADIN I симптомдық нейропатия кезінде бірнеше дозамен қысқа мерзімді көктамырішілік курсты зерттеді. Белгілі бір доза тобындағы симптом жақсаруының сигналы ремиелинизацияны немесе аурудың ұзақ мерзімді ағымы өзгергенін білдірмейді. ALADIN II шағын іріктемеде ұзақ пероральді әсерден кейінгі электрофизиологиялық параметрлерді бағалады, бірақ қатысушылар саны аз және өлшемдер әркелкі болғандықтан жалпылауға шектеу бар. ALADIN III-де көктамырішілік кезеңнен кейін пероральді курс жүргізілді; оның дизайнын тек таблетка әсеріне теңеуге болмайды. Осы айырмашылықтар зерттеулер бағдарламасын «тиімділігі біртіндеп күшейген» бір ғана сатылы қатарға айналдыруға жол бермейді.
Бастапқы SYDNEY зерттеуі 120 пациентте 600 мг рацемиялық ALA-ны 14 рет көктамыр ішіне енгізгеннен кейін плацебомен салыстырғанда TSS жақсарғанын хабарлады; бастапқы деңгейден орташа төмендеу 5,7 және 1,8 балл болды. SYDNEY 2-де 181 пациент бес апта бойы 600, 1200 немесе 1800 мг пероральді ALA не плацебо алды. Орташа TSS төмендеуі тиісінше 4,9, 4,5 және 4,7 балл болды, плацебода — 2,9 балл; бастапқы жарияланымда жүрек айнуы, құсу және бас айналудың дозаға тәуелді өсуі де сипатталған. Авторлар осы зерттеуде әсері мен көтерімділігі арасындағы ең орынды теңгерім 600 мг деп есептеді. Бұл — зерттелген популяциядағы қысқа мерзімді симптомдарға қатысты қорытынды, барлық химиялық форма үшін әмбебап баламалы доза емес. Бастапқы материал SYDNEY I үшін қате PMID 12610024 көрсетеді; 120 қатысушы туралы жарияланымның PMID нөмірі — 12610036.
Төрт жылдық NATHAN 1 зерттеуі алдын ала белгіленген бастапқы біріктірілген NIS-LL+7 соңғы нүктесіндегі теріс нәтижесімен ерекше маңызды: пероральді ALA 600 мг/тәулік пен плацебо арасындағы айырмашылық статистикалық мәнділікке жеткен жоқ (P=0,105). Кейбір қосалқы неврологиялық тексеріс көрсеткіштері мен жауап берушілер талдауы ALA тобында қолайлырақ болғанымен, жүйке өткізгіштігінің параметрлері мен TSS мәндері елеулі ерекшеленбеді. Плацебо тобында объективті жүйке өткізгіштігі аз өзгеріп, үдеудің алдын алуды анықтау қиындады. Бастапқы материал NIS-LL-ді бастапқы нүкте деп қате көрсетіп, оның қосалқы нәтижесін аурудың баяулағанына дәлел ретінде түсіндіреді. Негізді қорытынды бұдан тар: кей белгілер жақсаруы мүмкін, бірақ бастапқы біріктірілген нәтиже расталмады; зерттеу ремиелинизацияны, ойық жараның алдын алуды немесе «абсолютті қауіпсіздікті» дәлелдемейді.
Зерттеу бағдарламасы
Енгізу жолы және ұзақтығы
Не өлшенді
Нәтижелер қандай қорытындыны қолдайды
ALADIN I және SYDNEY
Көктамырішілік ALA, апталар
TSS симптомдары және қосымша белгілер
Қысқа мерзімді симптомдық сигнал; ұзақ мерзімді нейропротекцияның дәлелі емес.
SYDNEY 2
Пероральді ALA, бес апта
Бастапқы TSS және көтерімділік
Плацебомен салыстырғанда симптомдар азайды; жоғары дозалардың анық басымдығы болмады әрі көтерімділігі нашар болды.
NATHAN 1
Пероральді ALA, төрт жыл
Бастапқы біріктірілген NIS-LL+7; қосалқы бағалар
Бастапқы нәтиже теріс; кей қосалқы неврологиялық бағалар қолайлы болды.
2 типті қант диабетіндегі клемп-зерттеулер көктамырішілік ALA-дан кейін глюкозаны пайдаланудағы қысқа мерзімді өзгерістерді қарастырды, ал шағын пероральді курстар инсулинге сезімталдық пен жеке метаболизм маркерлерін бағалады. Клемп инсулин мен глюкозаның бақыланатын инфузиясы кезінде физиологиялық жауапты өлшейді; ол жүрек-қантамыр оқиғаларының азаюын, диабет ремиссиясын немесе белгілі бір тұздың тиімділігін дәлелдемейді. Koh және әріптестері семіздігі бар адамдардың дене салмағын зерттеді, бірақ бастапқы мақала бұл жұмысты American Journal of Clinical Nutrition журналына қате теліген: көрсетілген жұмыс American Journal of Medicine журналында жарияланған. Мұндай зерттеудегі салмақ пен биомаркер өзгерістері ALA-ны семіздік емі деуге негіз емес. MASLD үшін AMPK–ACC, β-тотығу және SREBP-1c жасушалық механизмдері қызық, алайда АЛТ/АСТ немесе жеке маркердің төмендеуі стеатогепатиттің гистологиялық басылуына және фиброз қаупінің азаюына тең емес.
ISLAND зерттеуінде метаболизм синдромы бар пациенттер төрт апта бойы ирбесартан, ALA, олардың қосындысы немесе плацебо алып, иық артериясының ағынға тәуелді дилатациясы мен қабыну маркерлері бағаланды. FMD — ультрадыбыс жағдайларына, бастапқы функцияға және қатарлас емге сезімтал тамырлық суррогат; статистикалық мәнді өзгерістің өзі инфаркт не инсульттің алдын алуды дәлелдемейді. BH4 қолжетімділігін, эндотелийлік NO-синтаза жұптасуын және NO өнімін ұстап тұру болжамы физиологиялық тұрғыдан қисынды, бірақ ISLAND қатысушыларында BH2-ні BH4-ке дәл DHLA тікелей қалпына келтірді деген бастапқы мәлімдеме FMD нәтижесінен шықпайды. Бұл тәжірибе жүрек-қантамыр оқиғалары туралы деректерді немесе eNOS-ты тікелей өлшеуді алмастырмайды.
Ішке қабылдағаннан кейінгі экспозиция: энтероцит, бауыр, тін
Ішке қабылданғаннан кейін бос ALA тіндерге қолжетімді болмас бұрын еруі, ішек эпителийінен өтуі, қақпа қан айналымы арқылы жүруі және алғашқы өту метаболизміне ұшырауы керек. Физиологиялық pH-та карбоксил тобы негізінен иондалған күйде болады; пассивті диффузия мен тасымалдағыштардың үлесі орта мен концентрацияға тәуелді. Тасымал модельдерінде биотин мен пантотенатты да тасымалдайтын натрийге тәуелді SMVT/SLC5A6 мультивитамин тасымалдағышы және монокарбоксилат тасымалдағыштары қарастырылады. Бірақ in vitro тасымалды көрсету адам энтероцитінде әр молекуламен дәл екі Na⁺ бірге жүретінін немесе тағам майлары мен аминқышқылдар дәл SMVT үшін тікелей бәсекелесетінін дәлелдемейді. Бос қышқылдың тасымалы мен метаболизмі E2-де ковалентті липоамидтің жиналуын сипаттамайды.
Әртүрлі дәрілік формалардың еру жылдамдығы, Cmax, ең жоғары деңгейге жету уақыты және AUC көрсеткіштері өзгеше; R және S энантиомерлерінің фармакокинетикасы да бірдей болмауы мүмкін. Carlson және Hermann зерттеулері мұндай салыстыруларға пайдалы, бірақ олардың нәтижелері нақты дозаға, препаратқа, талдау әдісіне, ашығу күйіне және іріктеме құрамына қатысты. Метаболизм бүйір тізбегін қысқартуды, тотықсыздану/тотығуды және күкіртті туындыларды қамтиды; бұдан кейін метаболиттердің бүйрек арқылы шығарылуы маңызды рөл атқарады. Бастапқы кестедегі тұрақты 20–30% биожетімділік, 25–35 минуттық жартылай шығарылу кезеңі және тұздың 40–60% артықшылығы барлық формаға ортақ «R-ALA экспозициясын» сипаттамайды. Фармакокинетикалық әсерді клиникалық әсерге көшіру үшін бірдей белсенді затпен, салыстырмалы режимдермен және өлшенген нәтижемен жасалған зерттеулер қажет; тек ең жоғары концентрациялар арақатынасы жеткіліксіз.
Тамақ тиокт қышқылы экспозициясын өзгерте алады; бұл нақты формаларға жасалған фармакокинетикалық тәжірибелерде зерттелген. Тамаққа қатысты қабылдау аралығы дәл сол зерттелген препараттың нұсқаулығына сай болуы керек; «таңғы асқа дейін қатаң түрде 30–45 минут бұрын немесе тамақтан кейін 2–3 сағаттан соң, тек минералсыздандырылған сумен» деген бастапқы қатаң ереже әмбебап клиникалық консенсус емес. Кәдімгі тағам молекуланың асқазанда термиялық полимерленуін туғызатыны немесе талшық терапиялық дозаны сандық түрде адсорбциялайтыны да дәлелденбеген. Тамақтың асқазан босауына, препараттың еруіне және ықтимал тасымалға әсерін бөліп қарастырып, ұсынылған механизмдерді пациенттерде өлшенгендей етіп көрсетпеу керек.
Егер препарат шынымен бос қышқылдың 1:1 қоспасы болса, массасы 600 мг рацемат әр энантиомерден шамамен 300 мг қамтиды. Тұз үшін молярлық масса бойынша қайта есептеу қажет, бірақ арифметикалық теңдік терапиялық баламалылықты білдірмейді. Жоғарыда сипатталған нейропатия сынақтарында натрий R-липоаты рацематпен экспозиция мен клиникалық нәтиже бойынша сәйкестендірілген дозаларда салыстырылмады. Сондықтан бастапқы материалдағы «200–300 мг тұз = 600 мг рацемат» және «500–600 мг тұз = жағымсыз әсерсіз 1200–1800 мг рацемат» формулалары негізсіз. Бір рецептурадан кейінгі жоғары пик қажетті сигналмен қатар жағымсыз әсерлерді де күшейтуі мүмкін; қабылдау режимін ауыстыру үшін нақты форма мен пациент жағдайы туралы дерек керек.
Біріктірілген әсерлер: зерттелген модель және дәлелденбеген «қоспа»
Hagen–Ames тобының тәжірибелерінде жасы үлкен егеуқұйрықтарға ацетил-L-карнитин (ALCAR) мен липой қышқылы беріліп, митохондриялық және мінез-құлық көрсеткіштері бағаланды. Бұл зерттеулер ацил алмасуы, тыныс алу және оксидативтік стресс өзара әсерін модельдеу үшін маңызды, бірақ адамда «митохондрияның жасаруын» дәлелдемейді. ALCAR карнитин-ацетилтрансфераза реакциясы арқылы ацетил топтарын береді және ұзын тізбекті ацил топтарының CPT1 арқылы тасымалдануына тең емес; ол бөлек CPT1 шолуында қарастырылады. Тіндік және нейрондық модельдерді де қамтитын ALCAR рөлі ацетил-L-карнитин туралы мақалада толығырақ берілген. Егеуқұйрықтарға берілген комбинация мен есте сақтау тестілерін адамдарға арналған натрий R-липоаты мен ALCAR-дың миллиграммен белгіленген таңғы «Ames хаттамасына» механикалық түрде көшіруге болмайды.
Бенфотиамин тиаминге тәуелді метаболизммен байланысты; пентозофосфат жолындағы транскетолаза TPP пайдаланады, пируватдегидрогеназаның E1 бөлігі де соған тәуелді. ALA-мен бірге қолдануды зерттейтін жұмыстар гипергликемиялық зақымның метаболизмдік маркерлерін қадағалауы мүмкін, алайда Du және әріптестері жариялаған шағын пациенттік зерттеу диабеттік ретинопатияның, нефропатияның және тамырлық асқынулардың «толық алдын алынғанын» дәлелдемейді. Гликолиз аралықтарын транскетолаза арқылы бағыттау AGE, полиол, гексозамин және PKC жолдарының бәрін бірдей өшіреді деген сөз емес. Бұл жолдар өзара байланысқан және гликемия мен тін контекстіне тәуелді. ALA қосу PDC-дегі кез келген бөгетті жоятыны да дәлелденбеген; E1-ге TPP жеткізу мен E2-нің липойлануы — екі бөлек шектеу.
Бастапқы материал ALA, NAC, аскорбат және CoQ10 комбинациясын созылмалы шаршау, фибромиалгия және инфаркттан кейінгі жағдайға арналған нақты дозалары бар міндетті «антиоксидант сатысы» ретінде ұсынады. NAC GSH синтезіне цистеин бере алады, CoQ10 тыныс алу тізбегінің кешендері арасында электрон тасымалдайды, аскорбат сулы редокс-желіге қатысады, бірақ бұлар әртүрлі компартменттер мен фармакокинетикалық бейіндерге ие. Қисынды реакциялардың қосындысы қоспаның тұтас клиникалық әсерін дәлелдемейді, антиоксидант жүктемесі бейімделу сигналдарын өзгертуі мүмкін. Сондықтан бастапқы мәтіндегі режим клиникалық ұсыным ретінде берілмейді.
Қауіпсіздік және экстраполяция шектері
Нейропатияға арналған қысқа сынақтарда ішке қабылдаудың жиі байқалған жағымсыз әсерлері жүрек айну, құсу және бас айналу болды; SYDNEY 2-де олардың жиілігі дозаға тәуелді болды. Доклиникалық LD50 және бір токсикологиялық сынақта сигналдың болмауы адамда тератогендік, мутагендік, созылмалы қауіп немесе кез келген тұзға төзбеушілік «мүлде жоқ» дегенді дәлелдемейді. NATHAN 1 зерттелген форма мен популяцияда ұзақ бақылау деректерін береді, бірақ бастапқы теріс нәтиже мен жекелеген ауыр жағдайлар «абсолют қауіпсіздік» деудің орнына мұқият түсіндіруді талап етеді. Жүктілік, балалық шақ және дәрілермен бірге қолдану жеке дәлел базасын қажет етеді.
Сирек, бірақ елеулі асқыну — инсулиндік аутоиммундық синдром (IAS, Хирата ауруы): бұрын инсулин қабылдамаған адамдарда эндогендік инсулинге қарсы антидене титрі жоғары болғандағы гипогликемия. ALA-мен байланысы клиникалық серияларда сипатталған және HLA генотипіне қатысты. Gullo және әріптестер сериясындағы IAS бар алты еуропалық пациент ALA қабылдаған; бесеуінде HLA-DRB1*04:03, біреуінде *04:06 болған. Бұл бастапқы кестедегі «еуропалықтарда *04:06 басым» дегенге қайшы. Дисульфид алмасуының иммуногендік эпитоптар түзуге қатысуы механизмдік болжам күйінде қалады; әр пациентте «DHLA инсулиннің нақты көпірін үзеді → CD4 жауабы» деген расталған тізбек емес. Аутоантиденелер инсулинді байланыстырып, оның босауын өзгерте алады, бірақ гипогликемия міндетті түрде көрсетілген 2–4 сағаттық аралықта бола бермейді.
ALA қабылдау аясында түсініксіз гипогликемия болса, ықтимал триггерді тоқтатып, дәрігерге жедел қаралып, глюкозаны өлшеп, себебін анықтау керек. Ауыр эпизод шұғыл көмекті қажет етеді. ALA-ны тоқтатқаннан кейін жақсару жиі байқалғанымен, «бәріне препаратты тоқтату жеткілікті, иммуносупрессия ешқашан қажет емес» деген бастапқы қорытынды қате: Gullo сериясындағы пациенттер глюкоза мен преднизон алған. Емдеу ауырлық пен расталған диагнозға, соның ішінде глюкозаны төмендететін дәріні артық қабылдау мен гиперинсулинемияның басқа себептерінен ажыратуға байланысты.
Инсулин немесе секретагогтармен бірге қолданғанда, әсіресе жаңа өнімді бастаған немесе бұрын гипогликемияға ұшыраған адамдарда қандағы глюкозаны клиникалық бақылау қажет. Бастапқы материал ұсынған глюкозаны төмендететін дәрі дозасын автоматты түрде 10–20% азайту негізсіз әрі зиян келтіруі мүмкін; ем режимін өзгерту өлшемдер мен емдеуші топ кеңесіне сүйенуі керек. Ішекте екі валентті катиондармен байланысу болжамы форма мен өзара әсер зерттелмей темір, магний және кальцийге ортақ міндетті 2–3 сағаттық аралықты негіздемейді. Қатерлі ісікке қарсы ем кезінде өзара әсер белгісіз болғандықтан, қоспаларды онкологпен талқылау қажет; мұнда ALA платина препараттарының тиімділігін төмендететіні дәлелденді деп айтылмайды.
Деректерді іріктеу әдісі мен шектері
Бұл — липоамид энзимологиясы, бос ALA фармакологиясы және клиникалық сынақтар туралы бастапқы 30 жарияланымнан тұратын жинақтың нарративтік шолуы; төменде сипатталған нысаналы тексеру 2026 жылғы 4 қазандағы редакцияға қатысты. SYDNEY, SYDNEY 2, NATHAN 1 және инсулиндік аутоиммундық синдром жөніндегі бастапқы есептер тікелей тексерілді; қалған еңбектер үшін берілген библиографиялық деректер мен зерттеу сипаттамалары пайдаланылды. Толық іздеу, метаталдау, барлық дереккөзге формалды қателік қаупін бағалау немесе GRADE жүргізілмеді. Клиникалық қорытындылар зерттелген химиялық түрмен, енгізу жолымен, дозамен, популяциямен, ұзақтықпен және алдын ала белгіленген соңғы нүктемен шектеледі. Қолжетімсіз толық мәтіндер, энантиомерлер мен тұздар арасындағы деректерді көшіру және тіндік экспозицияны тікелей өлшеудің болмауы түсіндіру сенімділігін шектейді.
«Липоамид PDC-де жұмыс істей ме?» деген сұрақты «белгілі бір диагнозда нақты ALA препаратының қандай пайдасы дәлелденген?» дегеннен ажыратқан пайдалы. Бірінші сұраққа фермент, липойлану және метаболизм ағыны туралы дерек керек; екіншісіне — зерттелген форма, жол, доза және ұзақтық бойынша клиникалық нәтиже. Диабеттік нейропатияның кей режимдерінде симптомдардың жақсаруы R-ALA-ны туа біткен липойлану ақауын түзететін, инсулинрезистенттілікті, MASLD-ті, жүрек-қантамыр оқиғаларын немесе «митохондрияның қартаюын» емдейтін әмбебап құрал етпейді.
Жиі қойылатын сұрақтар
PDC липоамиді мен ішке қабылданатын R-ALA бір нәрсе ме?
Жоқ. PDC-де липойл тобы E2 ақуызымен ковалентті байланысқан; ішке қабылданған ALA бөлек сіңіріліп, метаболизденеді, ал оның адамда E2-ні тікелей толықтыратыны анықталмаған.
Қоспа LIAS немесе LIPT1-дің тұқым қуалайтын ақауын түзете ала ма?
Бұл қабілет дәлелденбеген. Бұл гендер митохондрияда липойл тобын құрастыруға қатысады, сондықтан клиникалық мәселе жеке генетикалық және метаболизмдік бағалауды талап етеді.
ALA диабеттік нейропатияға көмектесе ме?
Рацемиялық ALA-ның қысқа сынақтары TSS бойынша симптомдардың азайғанын көрсетті. Төрт жылдық NATHAN 1 бастапқы біріктірілген нүктеге жеткен жоқ; бұл деректер аурудың тоқтағанын немесе басқа тұздың пайдасын дәлелдемейді.
600 мг рацематтың орнына 200–300 мг натрий R-липоатын қабылдауға бола ма?
Бұл дозалардың емдік баламалылығы клиникалық нәтижелерді тікелей салыстыру арқылы расталмаған.
Қандай маңызды сирек жағымсыз реакция сипатталған?
Гипогликемиямен өтетін инсулиндік аутоиммундық синдром. ALA қабылдау кезінде себепсіз ұстамалар болса, дәрігердің бағалауы және ықтимал триггерді тоқтату қажет.
Carlson DA, Smith AR, Fischer SJ, Young KL, Packer L. The plasma pharmacokinetics of R-(+)-lipoic acid administered as sodium R-(+)-lipoate to healthy human subjects. Altern Med Rev. 2007;12(4):343-351. PMID: 18069903.
Jacob S, Henriksen EJ, Schiemann AL, et al. Enhancement of glucose disposal in patients with type 2 diabetes by alpha-lipoic acid. Arzneimittelforschung. 1995;45(8):872-874. PMID: 7575750.