R-ALA, липоамид и пируватдегидрогеназа: что доказано — NutriFit
R-альфа-липоевая кислота: липоамид PDC, редокс-химия и пределы клинических данных
Митохондриальное липоилирование и каталитический цикл пируватдегидрогеназы отдельно от фармакологии свободной тиоктовой кислоты; клинические исследования нейропатии, экспозиция и безопасность.
Липоевая кислота присутствует в биохимии человека в двух принципиально разных состояниях. Внутри митохондрий R-липоильная группа ковалентно присоединена к лизину белков многокомпонентных ферментов и переносит промежуточные субстраты между их активными центрами. Пероральная альфа-липоевая кислота, свободный R-энантиомер или рацемат R/S, поступает снаружи, подвергается всасыванию и метаболизму и изучалась прежде всего как фармакологическое воздействие. Подмена одного состояния другим порождает центральную ошибку исходного материала: из обязательности липоамида для пируватдегидрогеназного комплекса (PDH/PDC) не следует, что добавка напрямую достраивает его E2-субъединицу, исправляет генетический дефект липоилирования или снимает любое торможение окисления пирувата.
От открытия кофактора к вопросу о хиральности
В исследованиях бактериального роста липоат обнаружили как фактор, необходимый для отдельных метаболических реакций; выделение и структурная характеристика вещества в середине XX века открыли путь к изучению его функции в дегидрогеназных комплексах. Исторические названия «фактор ацетата» и «протоген» отражали наблюдение за культурой бактерий, а не признание альфа-липоевой кислоты витамином человека. В тканях основной функциональный пул находится в виде белково-связанного липоамида, поэтому малое количество свободной кислоты не свидетельствует о малой роли кофактора. Слова «универсальный антиоксидант» и «антиоксидант антиоксидантов» относятся к историческим гипотезам о свободной кислоте и дигидролипоевой кислоте; их следует проверять по доступным концентрациям и конечным точкам, а не переносить на ферментно связанный липоамид.
Формула свободной альфа-липоевой кислоты — C8H14O2S2, молярная масса около 206,33г/моль. Пятичленное 1,2-дитиолановое кольцо содержит дисульфидную связь, а алифатическая цепь заканчивается карбоксильной группой. Асимметрический атом углерода C3 определяет R- и S-энантиомеры. Митохондриальный путь биосинтеза формирует природную R-конфигурацию; многие промышленно полученные препараты тиоктовой кислоты представляют собой рацемат. Знак оптического вращения зависит от растворителя, температуры и длины волны, а конфигурация R/S определяется правилами приоритета заместителей: эти два обозначения нельзя отождествлять без экспериментального условия.
Восстановление дисульфидного кольца даёт две тиольные группы дигидролипоевой кислоты (DHLA):
R−LA+2e−+2H+⇌R−DHLA.
Для энзимологии существенна стереоселективность активных центров, но она не означает, что S-форма всегда антагонистична, блокирует LIPT1 у человека или ухудшает клинический результат рацемата. Утверждения исходника о трёх- или пятикратном различии Km, конкурентном насыщении SMVT и снижении захвата глюкозы на фиксированный процент нельзя превращать в общую фармакокинетическую закономерность без указания фермента, субстрата, среды и концентраций. Исследования фармакологического действия чистого R-энантиомера и рацемата следует сравнивать как разные вмешательства, а не объявлять каждый грамм S-энантиомера «токсическим балластом».
Пятичленное дисульфидное кольцо допускает реакции раскрытия и полимеризации; особенно это значимо для чистых субстанций при производстве, нагреве и хранении. Солевые формы, включая натрия R-липоат, отличаются растворимостью и физической стабильностью от свободной кислоты, а растворение в желудочно-кишечной среде меняет химическое состояние. Технологическое преимущество конкретной формы требует указания температуры, влажности, состава наполнителей, времени хранения и аналитической методики. Исходная матрица с «абсолютной» растворимостью, неизбежной полимеризацией при комнатной температуре, фиксированными Tmax и кратным превосходством Cmax смешивает опыт с веществом в ампуле и клиническую фармакокинетику различных форм; без сопоставимого исследования её цифры не являются универсальными свойствами R-липоата.
Как клетка собирает липоамид внутри митохондрии
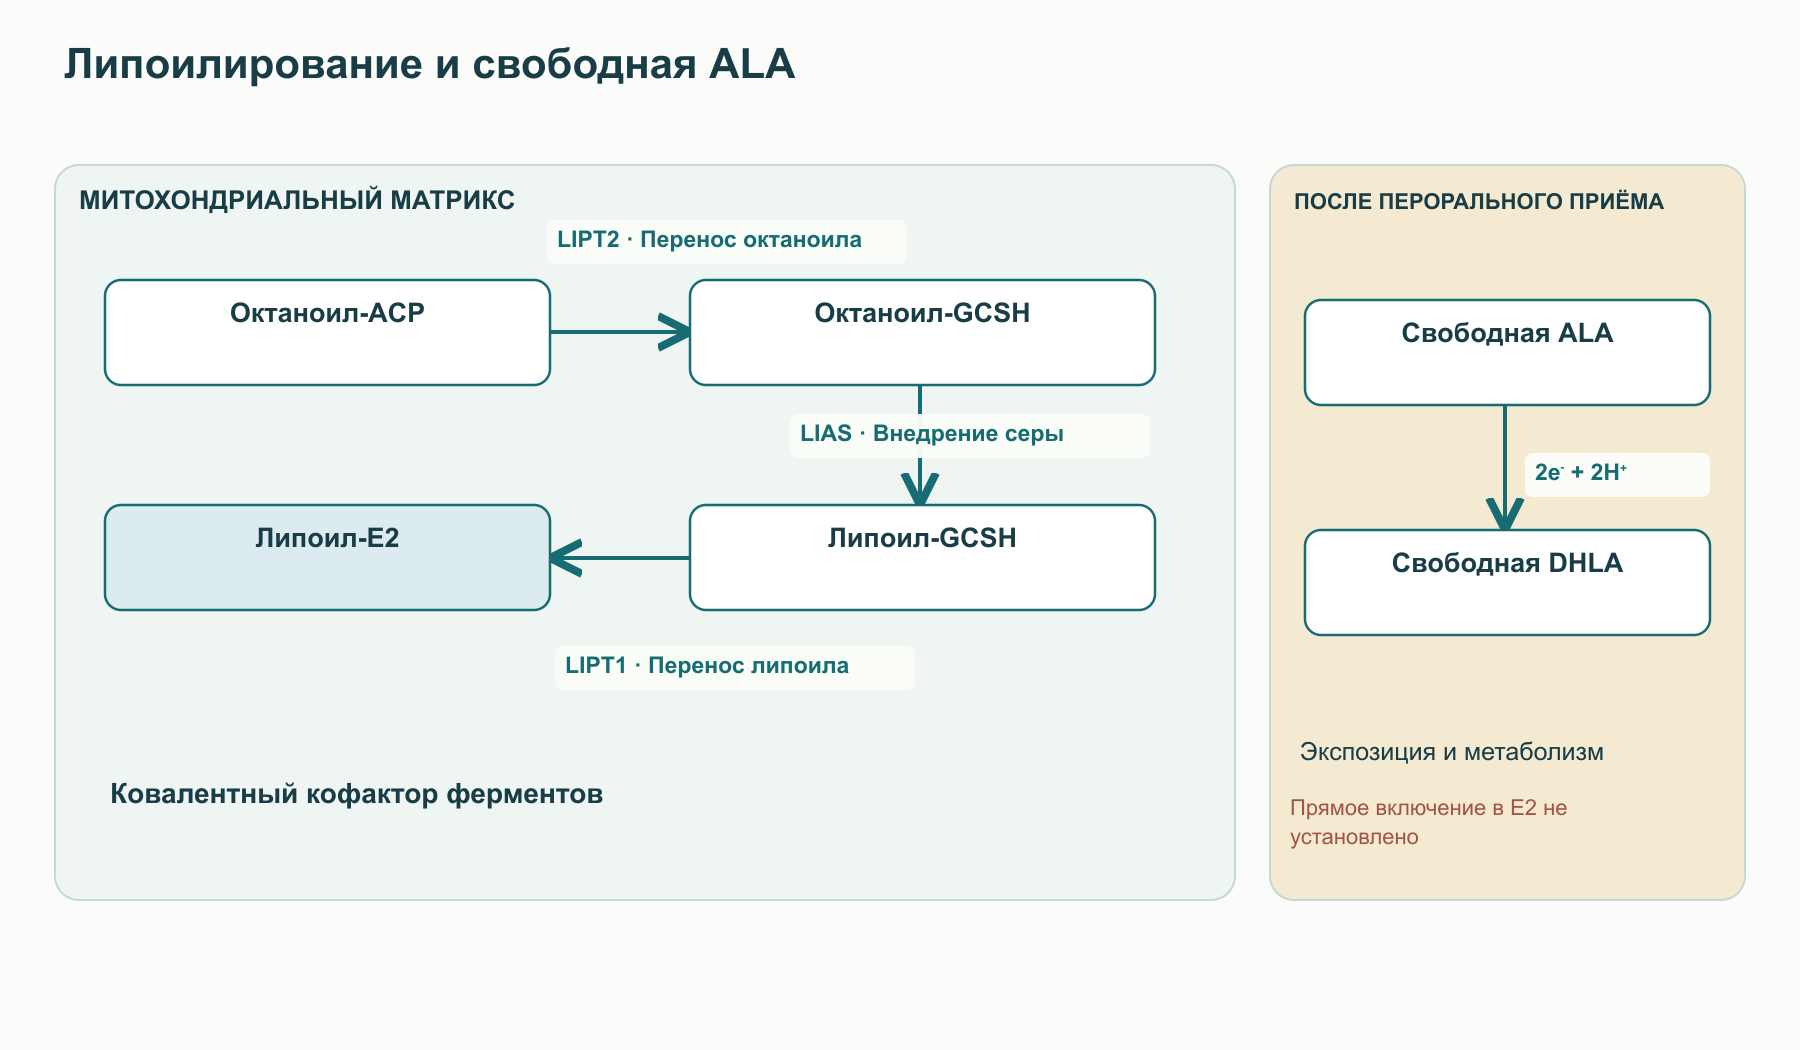
Митохондриальный путь синтеза жирных кислот II типа поставляет октаноильную группу, связанную с ацил-переносящим белком (octanoyl-ACP). LIPT2 переносит её на определённый лизин H-белка глицин-расщепляющей системы, создавая октаноил-H-белок. Затем LIAS, фермент семейства radical-SAM с железо-серными кластерами, формирует дисульфидный дитиолановый остов посредством внедрения атомов серы в октаноильную цепь. LIPT1 переносит уже сформированную липоильную группу с H-белка на E2-субъединицы дегидрогеназных комплексов, в том числе DLAT комплекса PDC, DLST комплекса α-кетоглутаратдегидрогеназы и DBT комплекса разветвлённых α-кетокислот. Путь локализован в митохондрии и требует как сборки Fe–S-кластеров, так и доступности белковых акцепторов.
В реакции LIAS радикал, полученный при расщеплении S-аденозилметионина, активирует C–H-связи октаноильного остатка; вспомогательный кластер служит источником серы. Из-за разрушения такого кластера каталитическая повторяемость зависит от клеточного ремонта и биогенеза Fe–S-системы, а не только от присутствия свободной кислоты. Нарушения LIAS, LIPT1, LIPT2 и белков сборки кластеров могут вызывать тяжёлые врождённые метаболические синдромы с недостаточной липоилированностью нескольких ферментов. Эти заболевания показывают жизненную необходимость эндогенного пути; они не подтверждают, что пероральная R-ALA обходит генетический блок. В клетках млекопитающих возможность прямого включения свободного липоата в целевые белки зависит от наличия соответствующего salvage-механизма и не должна предполагаться по аналогии с бактериями.
Химическая форма
Где находится
Какая функция действительно установлена
Что остаётся отдельным вопросом
Октаноил-ACP и октаноил-GCSH
Митохондриальный биосинтез
Предшественники липоильной группы.
Доступность Fe–S-кластеров и активность LIAS в конкретной ткани.
Липоиллизин E2 или H-белка
Белковый комплекс матрикса
Ковалентный перенос промежуточной группы между активными центрами.
Степень липоилирования при конкретной болезни.
Свободная R-ALA, S-ALA и DHLA
Плазма и доступные клеточные компартменты после введения
Фармакологическое воздействие, зависящее от экспозиции.
Включение в белок, нужная внутритканевая концентрация и клинический эффект.
Липоильное плечо в каталитическом цикле пируватдегидрогеназы
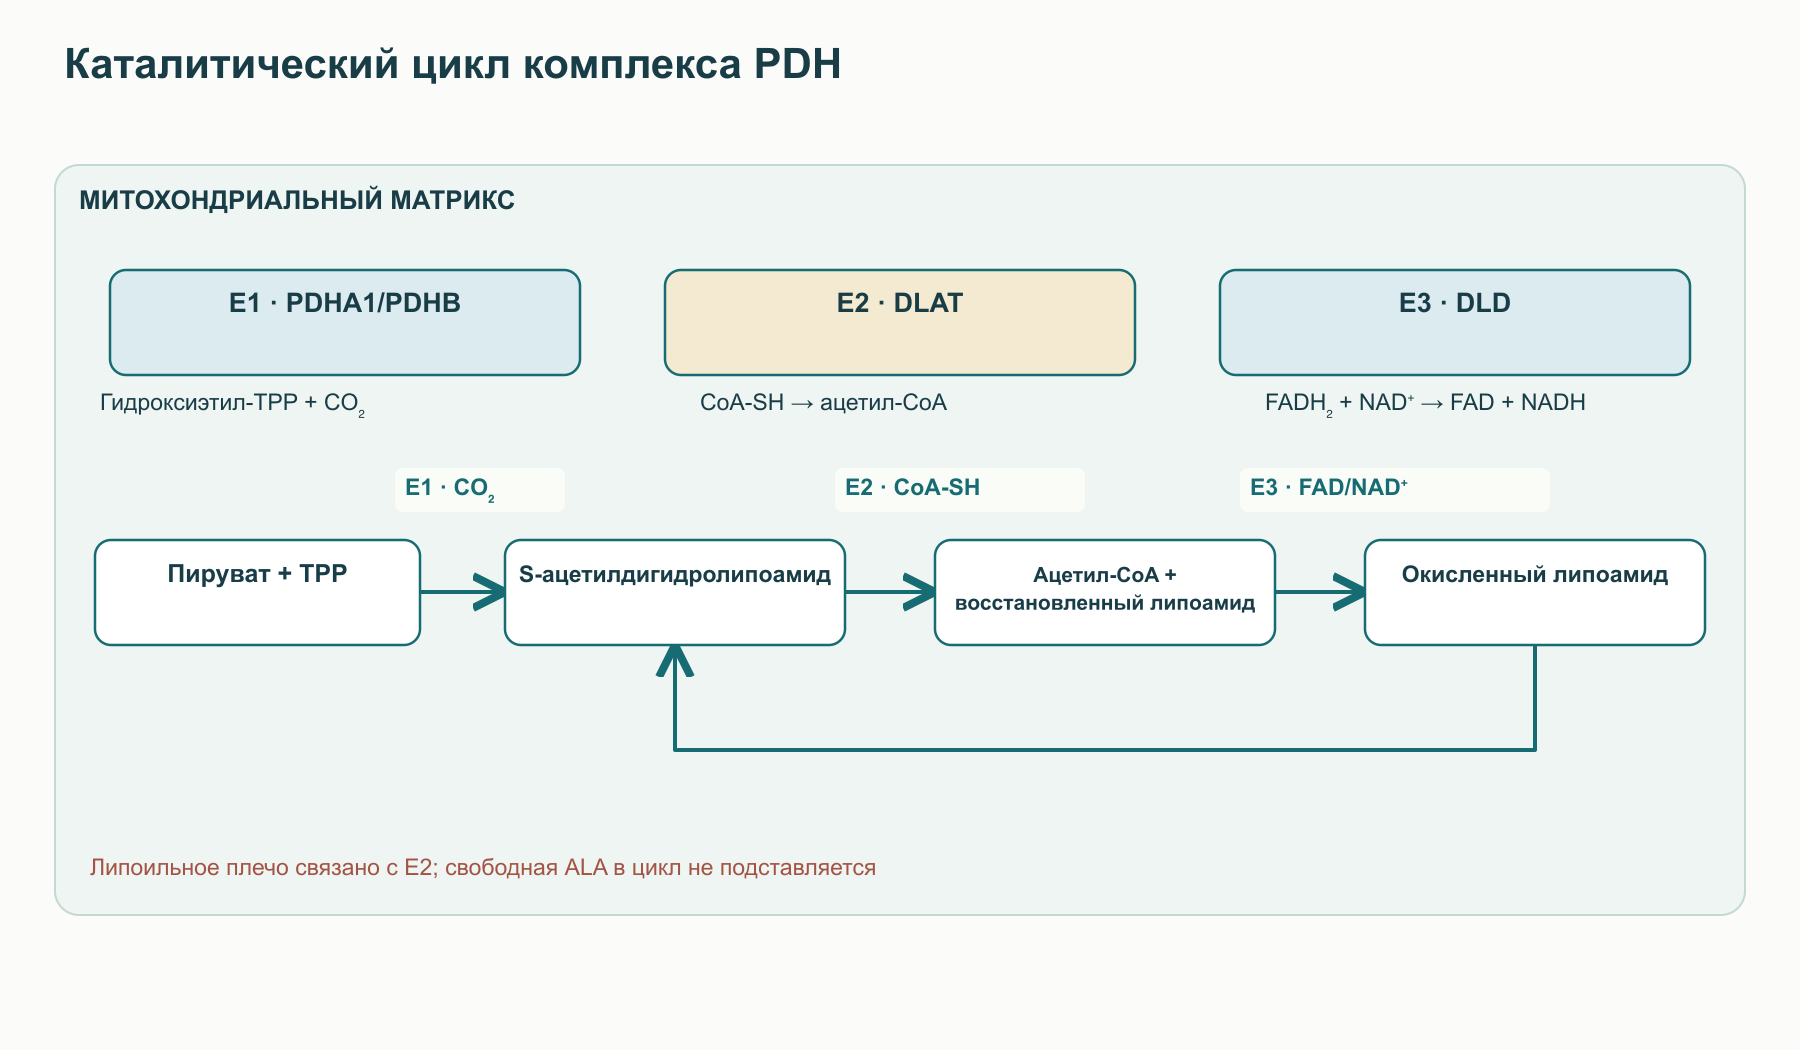
Пируватдегидрогеназный комплекс соединяет цитозольный гликолиз с митохондриальным циклом трикарбоновых кислот: пируват поступает в матрикс и превращается в ацетил-CoA. Его организация уменьшает потерю реакционноспособных промежуточных продуктов в водном объёме. E1 (пируватдегидрогеназа; у человека субъединицы PDHA1 и PDHB) связывает тиаминпирофосфат (TPP) при участии Mg²⁺, E2 (DLAT) несёт липоильные домены и катализирует перенос ацетила на CoA, E3 (DLD) через связанный FAD восстанавливает NAD⁺. Белок E3BP/PDHX способствует присоединению E3 к многомерному E2-кору. Архитектура и число копий субъединиц в препарате зависят от вида, состояния сборки и метода структурного анализа; фиксированная схема «ровно 60 E2 и 30 E1» не нужна для понимания химического цикла.
Липоильная группа присоединена амидной связью к ε-аминогруппе определённого лизина белкового домена. Подвижные линкеры дают этому домену доступ к разделённым активным центрам E1, E2 и E3; выражение «маятниковое плечо» описывает эту геометрию. Оно не означает, что свободная молекула R-ALA самостоятельно скачет между ферментами или что простое увеличение её концентрации ускоряет уже насыщенный, правильно липоилированный комплекс. Каталитический оборот требует одновременного наличия пирувата, CoA, NAD⁺, TPP, FAD, работающего белкового каркаса и доступного липоильного домена.
На E1 карбанион/илид TPP атакует карбонильный углерод пирувата; после декарбоксилирования образуется гидроксиэтил-TPP и выделяется CO₂. Окисленное дисульфидное кольцо белково-связанного липоамида принимает восстановительные эквиваленты от этого промежуточного продукта, тогда как гидроксиэтильная группа окисляется до ацетильной. Возникает S-ацетилдигидролипоильный домен, который доставляет ацетил к каталитическому участку E2. CoA-SH атакует тиоэфир, образуя ацетил-CoA; на E2 остаётся восстановленный дигидролипоамид. В третьей стадии E3 окисляет его две SH-группы до дисульфида, переводя восстановительные эквиваленты через белковую дисульфидную пару и FAD на NAD⁺. Восстановленный липоильный домен при этом не является окончательным продуктом: он регенерируется и готов к следующему переносу.
Суммарная реакция записывается как pyruvate+CoA−SH+NAD+→acetyl−CoA+CO2+NADH+H+. Она не сообщает сама по себе скорость потока в ткани: последняя зависит от субстратов, продукта ацетил-CoA, соотношения NADH/NAD⁺, фосфорилирования E1, доступности кислорода для реокисления NADH и активности следующих стадий цикла. В исходном материале точное стандартное ΔG∘′ и длина «плеча» представлены как универсальные для митохондрии; в живой клетке химический потенциал и конформация комплекса определяются конкретной средой, поэтому эти числа не переносятся на клиническую дозу добавки.
Участок PDC
Белок и обязательные кофакторы
Роль липоильной группы
Возможная причина снижения потока, не устраняемая автоматически свободной ALA
E1
PDHA1/PDHB, TPP, Mg²⁺
Принимает от E1 окисленный ацетильный промежуточный продукт.
Передаёт ацетил на CoA и меняет дисульфид на дитиол.
Нарушение DLAT, LIPT1/LIAS, сборки кора или доступности CoA.
E3
DLD, FAD, NAD⁺; E3BP/PDHX для организации
Реокисляет дигидролипоильное плечо.
Дефект DLD, высокая нагрузка NADH, проблема связывания E3.
Похожую химическую логику используют α-кетоглутаратдегидрогеназный комплекс (E2: DLST, образование сукцинил-CoA), дегидрогеназа разветвлённых α-кетокислот (E2: DBT, катаболизм лейцина, изолейцина и валина), а также дегидрогеназа 2-оксоадипата. В глицин-расщепляющей системе липоамид связан не с E2, а с H-белком GCSH, который переносит аминометильную группу между P-, T- и L-компонентами; при участии тетрагидрофолата формируется 5,10-метилентетрагидрофолат. Такие различия важны клинически: снижение липоилирования способно затронуть несколько комплексов и вызвать одновременно лактатный, аминокислотный и одноуглеродный метаболический фенотип. Но механизм каждой наследственной болезни зависит от собственного поражённого гена, а не от общей этикетки «дефицит липоевой кислоты».
Регуляция входа пирувата: PDK, PDP и редокс-состояние
Окисление пирувата регулируется фосфорилированием E1α. Изоформы пируватдегидрогеназных киназ PDK1–PDK4 уменьшают активность комплекса, фосфорилируя определённые сериновые сайты PDHA1; пируватдегидрогеназные фосфатазы PDP1/PDP2 снимают эти фосфаты. Кальциевый сигнал в работающей мышце может активировать PDP, тогда как избыток ацетил-CoA и NADH, меняя энергетическое состояние, способствует ограничению притока новых углеродных единиц в цикл. Конкретный вклад каждой изоформы и сайта зависит от ткани, питания и нагрузки, поэтому единая формула «Ser293 полностью выключает PDC» из исходника чрезмерно категорична.
При высокой доступности жирных кислот реакция Рэндла описывает конкуренцию за окислительные ресурсы и изменение выбора субстрата. Цитозольная лактатдегидрогеназа восстанавливает пируват до лактата, одновременно регенерируя NAD⁺ для гликолиза: pyruvate+NADH+H+⇌lactate+NAD+. Повышение лактата может возникать из-за разных причин — гипоксии, высокого гликолитического потока, нарушения утилизации пирувата, лекарств, заболеваний печени; это не специфический тест на недостаток свободной ALA. Исходное утверждение, будто введение R-ALA напрямую ингибирует все PDK, активирует PDP1 и «ликвидирует» гиперлактатемию, не подтверждено механистической связью с липоилированием E2 и не может служить клиническим протоколом. Для установления действия на PDC нужны измерения фосфорилирования PDHA1, изотопного потока пируват→ацетил-CoA и контроль других причин изменения лактата.
Переход ацильных групп в митохондриях и роль ацетилкарнитина разобраны отдельно в статье об ацетил-L-карнитине. Это родственная тема по метаболизму ацетила, но наличие ацетилкарнитинового буфера не заменяет реакцию PDH и её ковалентный липоамид.
Свободная ALA как редокс-реагент: возможности и ограничения
Окисленная циклическая ALA и восстановленная DHLA образуют пару, принимающую и отдающую два электрона и два протона. Её стандартный биохимический потенциал приводят в справочных условиях, но значение потенциала в ткани определяется отношением восстановленной и окисленной форм, pH, связыванием с белками и компартментом. Уравнение Нернста объясняет направление при заданных концентрациях; один список стандартных потенциалов не доказывает, что введённая свободная ALA последовательно восстанавливает все антиоксиданты организма. Возможность передачи электронов определяется также доступностью субстрата, скоростью реакции и расположением молекул.
Восстановление дисульфида GSSG дигидролипоевой кислотой химически возможно: DHLA+GSSG→ALA+2GSH. В клетке основным устойчивым путём регенерации GSH служит глутатионредуктаза, использующая NADPH; образование GSH de novo зависит от глутамат-цистеинлигазы и поступления цистеина. Аскорбат способен восстанавливать токофероксильный радикал в мембранном интерфейсе, а GSH участвует в поддержании аскорбатного пула. Однако представленная в исходнике «замкнутая без-NADPH цепь» не является установленным автономным контуром: DHLA тоже должна быть восстановлена за счёт восстановительных эквивалентов, а клеточные концентрации после приёма добавки ограничены метаболизмом и выведением. Ссылку на ферроптоз следует читать как механистическую гипотезу о липидной пероксидации и GSH-зависимых системах, не как доказательство предотвращения этого вида гибели клеток у человека.
Путь KEAP1–NRF2–ARE показывает, как электрофильные и окислительные сигналы изменяют транскрипцию защитных генов. В базальном состоянии KEAP1 вместе с CUL3/RBX1 способствует убиквитинированию NRF2; при изменении функции сенсорных цистеинов доступный NRF2 образует комплекс с малыми белками Maf и связывается с ARE-последовательностями. Среди возможных ответов — изменения экспрессии GCLC/GCLM, NQO1, HMOX1 и транспортёра SLC7A11, но знак и величина ответа зависят от модели. Утверждение исходника, что именно свободная R-ALA непосредственно и одинаково модифицирует Cys151, Cys273 и Cys288 KEAP1, отделяет KEAP1 от CUL3 и обеспечивает многократное длительное повышение GSH, требует прямых опытов по аддуктам и транскрипции в конкретной ткани. Активацию NRF2 после обработки клеток нельзя автоматически приписывать прямому связыванию R-ALA с названными остатками: изменение редокс-среды и промежуточные сигналы тоже возможны.
Ионы железа и меди способны катализировать образование реакционноспособных частиц. Классическая реакция Фентона записывается как Fe2++H2O2→Fe3++OH−+∙OH; превращения супероксида и пероксида при участии железа создают связанный цикл. Две тиольные группы DHLA позволяют образовывать комплексы с металлами in vitro, но комплексообразование не эквивалентно безопасному «полному выключению» реакции Фентона. В зависимости от лиганда, pH и доступности восстановителей хелатирование может изменить редокс-активность железа, а свободные концентрации DHLA в конкретном компартменте остаются отдельным вопросом. Исходный вывод о детоксикации ртути, кадмия и мышьяка и их гарантированном выведении с желчью или мочой не следует из демонстрации химического связывания. При подозрении на отравление требуется клиническая токсикология, а не экстраполяция этой реакции на добавку.
В химических и клеточных системах исследуют взаимодействия ALA/DHLA с пероксинитритом, гипохлоритом, синглетным кислородом и радикалами. Нитрование тирозина, окисление липопротеинов и мембранная пероксидация служат измеримыми исходами таких опытов. Однако сами вещества различаются реакционной способностью, а гидроксильный радикал реагирует близко к месту образования: высокая константа скорости с ним не гарантирует биологической защиты на достижимой концентрации. В исходнике единая скорость 1,4×10⁶M−1s−1 и формула «молниеносной нейтрализации» распространяются на разные реагенты без условий измерения; здесь они не принимаются за кинетические константы терапии.
Инсулиновый сигнал и транспорт глюкозы
При липотоксичности и воспалении метаболиты липидов, митохондриальные АФК и стрессовые киназы могут изменять работу инсулинового рецептора и его субстратов. Активация некоторых изоформ PKC, JNK и IKK связана с ослаблением инсулинового ответа в экспериментальных моделях, но сериновое фосфорилирование IRS1 имеет множество сайтов, временных стадий и физиологических функций. Поэтому перечисленные в исходнике Ser307, Ser616 и Ser1101 не являются универсальными «патологическими переключателями», а цифра о доле всей постпрандиальной глюкозы, поглощаемой мышцей, зависит от методики, популяции и нагрузки. Даже снижение фосфорилирования выбранного сайта в клеточной линии не доказывает устранения системной инсулинорезистентности у человека.
После связывания инсулина рецептором его тирозинкиназная активность повышает тирозиновое фосфорилирование IRS-белков; регуляторная субъединица p85 класса IA PI3K распознаёт подходящие фосфотирозиновые мотивы, а каталитическая p110 образует PIP3 из PIP2. PIP3 рекрутирует белки с PH-доменами, включая PDK1 и AKT; фосфорилирование AKT в активационной петле и гидрофобном мотиве с участием mTORC2 поддерживает дальнейший сигнал. Это устоявшаяся карта пути, но карта сама по себе не показывает, на каком звене действует экзогенная ALA. Утверждение о прямом лиганд-независимом автофосфорилировании инсулинового рецептора R-ALA и точных обязательных остатках IRS1 требует прямого контроля связывания, дозы и независимости от инсулина; для человека такой эффект не следует из общей редокс-химии.
PTP1B, расположенная на цитозольной стороне эндоплазматического ретикулума, дефосфорилирует участники инсулинового сигнала. Её каталитический Cys215 чувствителен к обратимому окислению, что делает фермент потенциальной мишенью локального редокс-сигнала. Но из чувствительности Cys215 к окислителям нельзя вывести, что пероральная R-ALA селективно и полно блокирует PTP1B в мышце. Для такого утверждения нужны ферментные и клеточные измерения при достижимой экспозиции, а также разделение прямой модификации фермента и вторичных изменений концентрации пероксида. Числа pKa и перечень конкретных сериновых/тирозиновых сайтов из исходного описания здесь не используются как универсальный клинический механизм.
Фосфорилированный AKT регулирует TBC1D4/AS160, GAP для Rab-белков: после изменения его активности везикулы хранения GLUT4 получают возможность перемещаться и сливаться с мембраной миоцита либо адипоцита. В работе этого аппарата участвуют Rab, цитоскелет и SNARE-белки, включая синтаксин-4; параллельный путь при сокращении мышцы включает AMPK и TBC1D1. В клеточных и животных моделях сообщали о воздействии липоевой кислоты на захват глюкозы и GLUT4; относительный вклад AKT, AMPK, p38 MAPK и изменений энергетического состояния зависит от дозы и системы. В исходнике по цепи сигналинга сделан скачок к утверждению о массивном инсулин-независимом захвате глюкозы даже при практически отсутствующем инсулине или дефектном рецепторе. Это не клинически доказанная способность добавки заменить инсулин либо исправить рецепторный дефект.
Клиническая проверка: симптом, нервная функция и метаболический исход
Дистальная симметричная диабетическая полинейропатия объединяет боль и парестезии с объективно измеряемыми сенсорными, двигательными и проводниковыми нарушениями. Её механизмы включают хроническую гипергликемию, повреждение нервных волокон и сосудистые изменения; один редокс-механизм не описывает всего течения болезни. При оценке тиоктовой кислоты поэтому необходимо различать короткий симптомный эффект по шкале TSS, изменение неврологического осмотра, проводимость нервов и предотвращение инвалидизирующих осложнений. Исследования применяли разные формы и пути введения, преимущественно рацемическую ALA; их результаты не являются прямой оценкой натрия R-липоата.
В ALADIN I исследовали краткий курс внутривенного введения нескольких доз на фоне симптомной нейропатии. Сигнал улучшения симптомов в дозовой группе не означает ремиелинизацию либо изменение долгосрочного течения заболевания. В ALADIN II длительное пероральное воздействие оценивали по электрофизиологическим параметрам в небольшой выборке, но число участников и неоднородность измерений ограничивают генерализацию. ALADIN III применяло этап внутривенной терапии с последующим пероральным курсом; его дизайн нельзя сводить к эффекту только таблетированной формы. Такие различия объясняют, почему программу испытаний нельзя представить единой лестницей «всё более доказанной эффективности».
Первичная работа SYDNEY сообщила об улучшении TSS после 14 внутривенных введений 600 мг рацемической ALA по сравнению с плацебо у 120 пациентов; снижение от исходного уровня составило в среднем 5,7 против 1,8 балла. В SYDNEY 2 181 пациент в течение пяти недель получал перорально 600, 1200 или 1800 мг ALA либо плацебо. Среднее снижение TSS составило соответственно 4,9, 4,5 и 4,7 против 2,9 балла; в первичной публикации также описано дозозависимое увеличение тошноты, рвоты и головокружения. Авторы сочли 600 мг в этом исследовании наиболее разумным соотношением эффекта и переносимости. Это вывод о краткосрочных симптомах в изученной популяции, а не универсальная эквивалентная доза всех химических форм. В исходнике для SYDNEY I указан ошибочный PMID 12610024; публикация о 120 участниках имеет PMID 12610036.
Четырёхлетнее NATHAN 1 важно именно своим отрицательным результатом по заранее определённой первичной составной конечной точке NIS-LL+7: разница между 600 мг/сут пероральной ALA и плацебо не достигла статистической значимости (P=0,105). Отдельные вторичные показатели неврологического осмотра и анализ ответивших пациентов были благоприятнее в группе ALA, но параметры нервной проводимости и TSS значимо не различались. В плацебо-группе объективная проводимость почти не ухудшалась, что затруднило обнаружение профилактики прогрессирования. Исходник ошибочно называет NIS-LL первичной точкой и трактует её вторичный результат как доказанное замедление болезни. Корректный вывод уже: возможное улучшение некоторых признаков при отсутствии подтверждения первичного составного исхода; испытание не доказывает ремиелинизацию, предотвращение язв или «абсолютную безопасность».
Программа
Путь и горизонт
Что измеряли
Что позволяет заключить
ALADIN I и SYDNEY
Внутривенная ALA, недели
Симптомы TSS и дополнительные признаки
Краткосрочный симптомный сигнал; не доказательство долгосрочной нейропротекции.
SYDNEY 2
Пероральная ALA, пять недель
Первичная TSS, переносимость
Улучшение симптомов относительно плацебо; высокие дозы не показали явного преимущества и переносились хуже.
NATHAN 1
Пероральная ALA, четыре года
Первичный составной NIS-LL+7; вторичные оценки
Первичный исход отрицателен; отдельные вторичные неврологические оценки благоприятны.
Клэмп-исследования при сахарном диабете 2 типа изучали кратковременные изменения утилизации глюкозы после внутривенной ALA, а небольшие курсы перорального приёма — чувствительность к инсулину и отдельные метаболические маркеры. Клэмп измеряет физиологический ответ при контролируемой инфузии инсулина и глюкозы; он не доказывает снижения сердечно-сосудистых событий, ремиссии диабета или эффективности конкретной соли. В работе Koh и коллег исследовали массу тела у людей с ожирением, но исходная статья ошибочно приписала ей журнал American Journal of Clinical Nutrition: указанная работа опубликована в American Journal of Medicine. Изменение массы и биомаркеров в таком исследовании не является основанием считать ALA терапией ожирения. Для MASLD клеточные механизмы AMPK–ACC, β-окисления и SREBP-1c интересны, но снижение АЛТ/АСТ или отдельного маркера не эквивалентно гистологическому разрешению стеатогепатита и снижению риска фиброза.
В исследовании ISLAND у пациентов с метаболическим синдромом сравнивали ирбесартан, ALA, их сочетание и плацебо в течение четырёх недель по поток-зависимой дилатации плечевой артерии и воспалительным маркерам. FMD — сосудистый суррогат, чувствительный к условиям ультразвукового измерения, исходной функции и сопутствующей терапии; даже статистически значимое изменение не доказывает предотвращения инфаркта или инсульта. Гипотеза о поддержании доступности BH4, сопряжённости эндотелиальной NO-синтазы и продукции NO физиологически правдоподобна, но исходное заявление о прямом восстановлении BH2 до BH4 именно DHLA у участников ISLAND не вытекает из FMD. Серии сердечно-сосудистых событий и прямые измерения eNOS этим экспериментом не заменены.
Экспозиция после приёма: энтероцит, печень, ткань
Свободная ALA после приёма внутрь должна раствориться, пройти эпителий кишки, портальную циркуляцию и метаболизм первого прохождения, прежде чем окажется доступной ткани. При физиологическом pH карбоксильная группа в основном ионизирована; вклад пассивной диффузии и переносчиков зависит от среды и концентрации. В транспортных моделях обсуждаются натрий-зависимый мультивитаминный переносчик SMVT/SLC5A6, способный переносить также биотин и пантотенат, и переносчики монокарбоксилатов. Но демонстрация транспорта in vitro не устанавливает, что ровно два Na⁺ сопровождают каждую молекулу в человеческом энтероците или что пищевые жиры и аминокислоты прямо конкурируют именно за SMVT. Транспорт и метаболизм свободной кислоты не описывают сборку ковалентного липоамида на E2.
У разных лекарственных форм отличаются скорость растворения, Cmax, время достижения максимума и AUC; у R- и S-энантиомеров возможна различная фармакокинетика. Исследования Carlson и Hermann полезны для этих сравнений, но их результаты относятся к конкретной дозе, препарату, аналитике, состоянию натощак и составу выборки. Метаболизм включает укорочение боковой цепи, восстановление/окисление и серосодержащие производные, после чего значимую роль играет выведение метаболитов почками. Исходная таблица фиксированных 20–30% биодоступности, 25–35 минут периода полувыведения и 40–60% преимущества соли не описывает универсальную «экспозицию R-ALA» для всех форм. Для переноса фармакокинетического эффекта в клинический нужны исследования с одинаковой активной основой, сопоставимым режимом и измеренным исходом, а не одно отношение пиковых концентраций.
Употребление пищи может изменять экспозицию тиоктовой кислоты, что изучали в фармакокинетических экспериментах с конкретными формами. Временной интервал относительно еды должен соответствовать инструкции именно к изученному препарату; исходное категорическое правило «строго 30–45 минут до завтрака либо 2–3 часа после еды, только деминерализованная вода» не является универсальным клиническим консенсусом. Не доказано также, что обычная пища стимулирует термическую полимеризацию молекулы в желудке или что волокна количественно адсорбируют терапевтическую дозу. Имеет смысл разделять воздействие пищи на скорость опорожнения желудка, растворение препарата и возможный транспортный эффект, не выдавая предложенные механизмы за измеренные у пациентов.
Рацемат массой 600 мг содержит по массе примерно 300 мг каждого энантиомера, если препарат действительно представляет собой смесь 1:1 свободной кислоты. Для соли пересчёт по молярной массе необходим, но такое арифметическое равенство не создаёт терапевтическую эквивалентность. Испытания нейропатии, описанные выше, не сравнивали натрия R-липоат с рацематом в подобранных по экспозиции и клиническому исходу дозах. Следовательно, формулы исходника «200–300 мг соли = 600 мг рацемата» и «500–600 мг соли = 1200–1800 мг рацемата без побочных эффектов» не обоснованы. Более высокий пик после одной рецептуры сам по себе может повысить как желательный сигнал, так и нежелательные реакции; пересчёт назначения требует данных по данной форме и состоянию пациента.
Совместные воздействия: проверенная модель и неподтверждённый «стек»
В опытах группы Hagen–Ames старым крысам давали ацетил-L-карнитин (ALCAR) и липоевую кислоту и оценивали митохондриальные и поведенческие показатели. Эти исследования важны как модель взаимодействия ацильного обмена, дыхания и окислительного стресса, но не устанавливают «омоложение митохондрий» у человека. ALCAR предоставляет ацетильные группы через карнитин-ацетилтрансферазную реакцию и не равен переносу длинноцепочечных ацильных групп через CPT1; этот транспорт отдельно рассмотрен в разборе CPT1. Роль самого ALCAR, включая тканевые и нейрональные модели, подробнее раскрыта в статье об ацетил-L-карнитине. Крысиную комбинацию и её тесты памяти нельзя механически перевести в утренний «протокол Эймса» из натрия R-липоата и ALCAR с заданными миллиграммами для людей.
Бенфотиамин связан с тиамин-зависимым метаболизмом; транскетолаза пентозофосфатного пути использует TPP, а пируватдегидрогеназная E1 тоже требует TPP. Исследования комбинации с ALA могут отслеживать метаболические маркеры гипергликемического повреждения, однако опубликованная Du и коллегами небольшая работа у пациентов не может доказать «полное предотвращение» диабетической ретинопатии, нефропатии и сосудистых осложнений. Перенаправление промежуточных продуктов гликолиза через транскетолазу не означает выключение сразу всех путей AGEs, полиолов, гексозаминов и PKC. Эти маршруты взаимосвязаны и зависят от гликемии и тканевого контекста. Так же недоказано, что добавление ALA снимает любой блок PDC; TPP-обеспечение E1 и липоилирование E2 являются различными ограничениями.
Комбинацию ALA с NAC, аскорбатом и CoQ10 исходник строит как обязательную «антиоксидантную лестницу» с конкретными дозами для хронической усталости, фибромиалгии и после инфаркта. NAC может предоставлять цистеин для синтеза GSH, CoQ10 переносит электроны между комплексами дыхательной цепи, аскорбат участвует в водной редокс-сети, но это разные компартменты и фармакокинетические профили. Сумма правдоподобных реакций не даёт доказанного клинического эффекта всей смеси, а антиоксидантная нагрузка может менять адаптивные сигналы. Поэтому приведённый в исходнике режим не переносится в статью как клиническая рекомендация.
Безопасность и пределы экстраполяции
В кратких испытаниях нейропатии наиболее заметными нежелательными явлениями при пероральном приёме были тошнота, рвота и головокружение; в SYDNEY 2 их частота зависела от дозы. Доклиническая LD50 и отсутствие сигнала в одном токсикологическом тесте не доказывают «полное отсутствие» тератогенности, мутагенности, хронического риска у людей или переносимости каждой соли. NATHAN 1 даёт данные о длительном наблюдении для изученной формы и популяции, но отрицательный первичный исход и отдельные серьёзные события требуют аккуратного чтения, а не формулы «абсолютная безопасность». Беременность, детский возраст и сочетания с лекарствами требуют собственной доказательной базы.
Редкое, но существенное осложнение — инсулиновый аутоиммунный синдром (IAS, болезнь Хираты): гипогликемия при высоких титрах антител к эндогенному инсулину у людей без предшествующего введения инсулина. Ассоциация с ALA описана в клинических сериях и связана с HLA-генотипом. В серии Gullo и коллег шесть европейских пациентов с IAS принимали ALA; пять имели HLA-DRB1*04:03, один — 04:06. Это опровергает исходную схему, где для европейцев доминирующим назван 04:06. Роль дисульфидного обмена в появлении иммуногенных эпитопов остаётся механизмом-гипотезой, а не подтверждённой последовательностью «DHLA разрывает конкретный мостик инсулина → ответ CD4» у каждого пациента. Автоантитела способны связывать инсулин и менять его высвобождение, но время гипогликемии не обязано совпадать с заявленным окном 2–4 часа.
При необъяснимой гипогликемии на фоне ALA следует прекратить предполагаемый триггер и без промедления оценить состояние с врачом, измерить глюкозу и установить причину. Тяжёлый эпизод требует неотложной помощи. Отмена ALA часто сопровождалась улучшением, но исходный вывод «всем достаточно отмены, иммуносупрессия никогда не нужна» неверен: в серии Gullo пациенты получали глюкозу и преднизон. Тактика определяется тяжестью и подтверждённым диагнозом, включая отличие от передозировки сахароснижающих средств и других причин гиперинсулинемии.
При сочетании с инсулином или секретагогами глюкоза требует клинического наблюдения, особенно если пациент начинает новое средство и уже переживал гипогликемии. Автоматическое снижение дозы сахароснижающего препарата на 10–20% из исходника не обосновано и способно навредить; изменение схемы должно исходить из измерений и лечащей команды. Предположение о связывании двухвалентных катионов в кишечнике не обосновывает единый обязательный интервал 2–3 часа для железа, магния и кальция без исследования формы и взаимодействия. При противоопухолевой терапии любые добавки обсуждают с онкологом из-за неопределённости взаимодействий; заявление, что ALA доказанно снижает эффективность платиновых препаратов, здесь не сделано.
Метод и границы отбора данных
Это нарративный разбор исходной подборки из 30 публикаций по энзимологии липоамида, фармакологии свободной ALA и клиническим испытаниям; описанная ниже адресная сверка относится к редакции от 4 октября 2026 года. Адресно сверены первичные сообщения о SYDNEY, SYDNEY 2, NATHAN 1 и инсулиновом аутоиммунном синдроме; для остальных публикаций использованы предоставленные библиографические сведения и описания исследований. Исчерпывающий поиск, метаанализ, формальная оценка риска смещения и GRADE не выполнялись. Выводы о клинике ограничены изученной химической формой, путём введения, дозой, популяцией, длительностью и заранее заданной конечной точкой. Неоткрытые полные тексты, перенос данных между энантиомерами и солями и отсутствие прямых измерений тканевой экспозиции ограничивают определённость интерпретации.
Практически полезно различать вопрос «работает ли липоамид в PDC?» и «какую пользу доказал конкретный препарат ALA при конкретном диагнозе?». Для первого нужны данные о ферменте, липоилировании и метаболическом потоке; для второго — клинические исходы изученной формы, пути, дозы и длительности. Симптомное улучшение при отдельных режимах диабетической нейропатии не превращает R-ALA в средство коррекции врождённого дефекта липоилирования, универсальную терапию инсулинорезистентности, MASLD, сосудистых событий или «митохондриального старения».
Частые вопросы
Одно ли и то же липоамид PDC и пероральная R-ALA?
Нет. В PDC липоильная группа ковалентно связана с E2-белком; принятая внутрь ALA имеет собственное всасывание и метаболизм, а прямое достраивание E2 у человека не установлено.
Исправляет ли добавка наследственный дефект LIAS или LIPT1?
Такая способность не доказана. Эти гены участвуют в митохондриальном пути сборки липоильной группы, поэтому клинический вопрос требует отдельной генетической и метаболической оценки.
Помогает ли ALA при диабетической нейропатии?
Короткие испытания рацемической ALA показали уменьшение симптомов по TSS. Четырёхлетнее NATHAN 1 не подтвердило первичную составную точку; результаты не доказывают остановку болезни или пользу другой соли.
Можно ли заменить 600 мг рацемата 200–300 мг натрия R-липоата?
Терапевтическая эквивалентность таких доз не подтверждена прямым сравнением по клиническим исходам.
Инсулиновый аутоиммунный синдром с гипогликемией. При необъяснимых эпизодах на фоне ALA нужна медицинская оценка и прекращение предполагаемого триггера.
Carlson DA, Smith AR, Fischer SJ, Young KL, Packer L. The plasma pharmacokinetics of R-(+)-lipoic acid administered as sodium R-(+)-lipoate to healthy human subjects. Altern Med Rev. 2007;12(4):343-351. PMID: 18069903.
Jacob S, Henriksen EJ, Schiemann AL, et al. Enhancement of glucose disposal in patients with type 2 diabetes by alpha-lipoic acid. Arzneimittelforschung. 1995;45(8):872-874. PMID: 7575750.