Қай пайыздағы гетероплазмия ауру туғызады?
Бір шек жоқ. Вариант, тін, сақталған көшірмелер, энергия қажеті және зақым жасушалар таралуы маңызды.
Митогеном, TFAM, mtROS, BER/POLG, делециялар мен тіндік шектер; қартаю, cGAS–STING/TLR9/NLRP3, митофагия, биогенез және редакциялау шектеулері.
Митохондриялық ДНҚ (мтДНҚ) жасушалық энергетикаға генетикалық матрица, көптеген көшірмелер популяциясы және ықтимал қауіп сигналы ретінде қатысады. Негіздің зақымдануы әлі бекіген мутацияны білдірмейді; мутант көшірмелердің үлесі тін қызметін өздігінен анықтамайды; қанда мтДНҚ табылуы қабыну рецепторының белсенгенін дәлелдемейді. Осы айырмашылықтар тотығу фосфорлануын тұқым қуалайтын аурулармен, сомалық мозаицизммен және қартаюмен байланыстыруға мүмкіндік береді, молекулалық гипотезаны дайын емдеу хаттамасына айналдырмайды.
Талдау адамның митогеном құрылымын, редокс-зақым мен репарацияны, гетероплазмия динамикасын, қартаю тәжірибелерін, иммундық тануды және митохондриялық пулға ықпал ету жолдарын қарастырады. Құрылымдық, жасушалық және жануар нәтижелерін адамдардағы клиникалық нәтижелерден ажырату керек: антиоксидантты нысаналы жеткізу, митофагияны күшейту және ДНҚ тізбегін өзгерту әртүрлі міндеттерді шешеді.
Митохондриялар бактериялық эндосимбионттан шыққан; эволюция барысында оның генетикалық аппаратының көп бөлігі жоғалған немесе ядроға ауысқан. Салыстырмалы биология органелланың альфапротеобактериялық шығуын және эукариот иесінің археялық тармақпен туыстығын қолдайды. Бірақ нақты иесі, оқиғалар реті мен симбиоздың дәл уақыты гипотеза ретінде қалпына келтіріледі; белгілі қазіргі микроорганизмнің жұтылуын тікелей бақылаған оқиға ретінде сипаттауға болмайды.
Адамдағы митохондриялық ақуыздардың басым көпшілігін ядролық гендер кодтайды. Цитозольдегі синтезден кейін прекурсорлар органеллаға бағытталып, сыртқы мембранадағы TOM кешенінен өтеді, кейін TIM23 және TIM22 сияқты сұрыптау жүйелерін пайдаланады. Импорт, мембранаға ену және көпсуббірлікті кешендердің жиналуы митохондриялық рибосомадағы шағын ақуыз тобының синтезімен үйлесуі тиіс. Сондықтан өз геномы митохондрияны дербес организм етпейді: қызметі екі генетикалық жүйенің тұрақты өзара әрекетін қажет етеді (Falkenberg et al., 2007).
CoRR гипотезасы, редокс-реттеу үшін бірге орналасу, жергілікті экспрессияның сақталуын тыныс алу тізбегінің күйіне жауап беру қажеттілігімен байланыстырады. Басқа түсіндіру мембраналық суббірліктердің гидрофобтығын және жиналу талаптарын қарастырады: олар синтезді цитозольге көшіруді қиындатады. Екі түсіндіру бірін-бірі толықтырады әрі эволюциялық модель болып қалады; кез келген митохондриялық полипептид импорты барлық жағдайда физикалық мүмкін емес екенін дәлелдемейді.
Адам мтДНҚ-сының қайта қаралған Кембридж референстік тізбегі rCRS 16 569 негіз жұбынан тұрады. Ол варианттарды сипаттайтын координаталар жүйесі, барлық адамның ұзындығы мен тізбегі бірдей деген тұжырым емес. Молекула әдетте қос тізбекті сақиналы ДНҚ. Ауыр H және жеңіл L тізбектері тарихи түрде денатурациядағы қалқымалы тығыздықпен ажыратылған; атаулар екі хромосоманы емес, құрам асимметриясын көрсетеді (Anderson et al., 1981; Andrews et al., 1999).
Қабылданған аннотацияда H тізбегінде 12 ақуыз гені, екі рРНҚ және 14 тРНҚ, L-де ND6 және сегіз тРНҚ бар. Асимметрия транскрипция мен репликация модельдері үшін маңызды. Бірақ «кодтаушы тізбек» полимераза тікелей оқитын комплементарлы матрицамен бір ұғым емес.
Негізгі кодтамайтын бақылау аймағы сақиналы rCRS-тің шартты басталу нүктесін кесіп өтеді. HSP/LSP промоторлары мен H репликация бастауы соған байланысты; L бастауы басқа аймақта. Бақылау аймағы мен D-loop дәл синоним емес: қысқа 7S ДНҚ сақталып, ата-аналық бір тізбекті ығыстырғанда үш тізбекті D-loop түзіледі. Уақытша бір тізбекті бөліктер химиялық осал, бірақ бұл бүкіл аймақ үнемі ақуызсыз қорғаныссыз дегенді білдірмейді.
Адам митогеномында әдеттегі интрондар жиыны және ұзын генаралық аралықтар жоқ. ATP8/ATP6 оқу рамкалары 46 нуклеотидке, ND4L/ND4 жетіге қабаттасады. Қысқа сегмент зақымы бірнеше функционалдық элементке әсер етуі мүмкін. Алайда вариант пен сақталған көшірмелерді ескермей, оны тұрақты ауру ықтималдығына айналдыруға болмайды.
Транскрипция ұзын полицистрондық РНҚ түзеді. тРНҚ-пунктуация моделінде тРНҚ көршілес транскрипттердің көптеген өңдеу шекарасын белгілейді: MRPP1/2/3 бар митохондриялық RNase P 5′-ұштарды, ELAC2 3′-ұштарды қалыптастырады. Барлық шекара бір сызбаға бағынбайды; жетілуге басқа ақуыздар, модификациялар мен тұрақтылық бақылауы қатысады. Кейбір ақуыз транскрипттерінің T/TA стоп-сигналы толық емес, РНҚ полиаденилденуі UAA-ны аяқтайды. Бұл қалыпты экспрессия архитектурасы, жүре пайда болған репарация ақауы емес.
МтДНҚ-да 37 ген бар: 13 ақуыз, 22 тРНҚ, екі рРНҚ. Рибосоманың кіші және үлкен суббірлігі 12S/16S рРНҚ қолданады; 55S бүкіл кешеннің седиментациясын сипаттайды, 28S пен 39S қосындысы емес. Шағын тРНҚ жиыны арнайы тану ережелері мен антикодон модификациялары арқылы кодондарды оқиды. Бұл модификацияланбаған кез келген U кез келген негізбен еркін жұптасады деген сөз емес.
| OXPHOS кешені | МтДНҚ кодтайтын ақуыздар | Органелла геномының маңызы |
|---|---|---|
| I, NADH:убихинон-оксидоредуктаза | ND1, ND2, ND3, ND4, ND4L, ND5, ND6 | Электрон мен протон тасымалын байланыстыратын мембраналық элементтер |
| II, сукцинатдегидрогеназа | Жоқ | Суббірліктері ядролық; жеке ақау мтДНҚ вариантын анықтамайды |
| III, кешені | CYTB | Цитохром b Q-циклдің маңызды бөліктерін түзеді |
| IV, цитохром-c-оксидаза | CO1, CO2, CO3 | Негізгі мембраналық суббірліктер; металл орталықтары біркелкі емес |
| V, АТФ-синтаза | ATP6, ATP8 | Қалыпты жиналу мен байланысуға қажетті мембраналық бөліктер |
Митохондриялық код стандарттан өзгеше: UGA триптофан, AUA метионин кодтайды; адам аннотациясында AGA/AGG трансляцияның аяқталуымен байланысты. Нақты терминацияның қосымша ерекшеліктері бар, сондықтан кодон кестесі рибосоманың бүкіл жұмысын сипаттамайды. тРНҚ түрлі суббірліктерді синтездейтіндіктен, патогенді тРНҚ варианты ақуыз генінен тыс болса да бірнеше кешенді зақымдауы мүмкін.
МтДНҚ қолдау, репликация және экспрессия ақуыздары бар нуклеоидтарға қапталған. TFAM екі HMG домені, линкер және C-ұштық аймақтан тұрады; кіші сайға байланысу ДНҚ-ны бүгеді, құрылымдық жұмыстар промотор кешеніндегі U-пішінді көрсетті. Қаптау полимераза қолжетімділігі мен транскрипцияны өзгертеді; TFAM/ДНҚ арақатынасы нуклеоид қасиеттеріне әсер етеді (Ngo et al., 2011; Rubio-Cosials et al., 2011).
Өлшемі ондағаннан шамамен жүз нанометрге дейін және геном саны әдіс пен жасуша күйіне тәуелді. Көп нуклеоидта аз, жиі бір молекула бар, бірақ әмбебап тұрақты стехиометрия жоқ. TFAM байланысу тығыздығын бір препараттан барлық тін мен метаболизм кезеңіне көшіруге болмайды.
Канондық ядролық нуклеосомалар мтДНҚ қаптауының негізгі тәсілі емес. Бірақ олардың жоқтығы «жалаңаш ДНҚ» емес: TFAM және басқа ақуыздар қорғайды. Ядролық гистондар да радикалдарға өтпейтін қабырға емес. Екі компартментті салыстыру химиялық әсерді, топологияны, репарацияны және молекула айналымын талап етеді.
Нуклеоидтар ішкі мембрана және ұйымдастыру аймақтарымен байланысты; ATAD3A, MICOS және басқа ақуыз жүйелері қарастырылады. Тыныс тізбегіне жақындық жергілікті редокс ортаның маңызын көрсетеді, бірақ барлық ДНҚ молекуласы бірдей тотықтырғыш дозасын алады деген дәлел емес. ROS субстраттарға, тасымалдаушылардың тотықсыздануына, электрон бағытына, потенциал мен қорғаныс ферменттеріне тәуелді (Murphy, 2009).
I кешенде флавиндік , убихинондық , III кешенде маңызды. I супероксиді негізінен матрикске, III өнімі матрикс пен мембранааралық кеңістікке шыға алады. Барлық mtROS әр кешеннен тек ДНҚ-ға бағытталған бір ағын емес; «электрон ағуы» тұрақты үлес емес.
Матрикстік SOD2 супероксидті сутек пероксидіне айналдырады:
сигналға қатысады әрі PRDX3, GPX1 сияқты пероксиредоксиндер мен глутатионпероксидазалар арқылы жойылады; GPX4 липид гидропероксидтері үшін ерекше маңызды. Қолжетімді Fe²⁺ болғанда Фентон реакциясы аса белсенді гидроксил радикалын түзеді:
реактивтілігі зақымды оның түзілген орны мен жақын нысаналарға тәуелді етеді. Бұл жергілікті химияны түсіндіреді, бірақ жасуша, тін және организм үшін бірыңғай диффузия қашықтығы не ROS шегін орнатпайды.
Гуанин тотығуы 8-оксогуанин түзеді; 8-oxo-dG және 8-OHdG дезоксинуклеозидті білдіреді. ДНҚ ішіндегі негіз бен зәрдегі бос өнім әртүрлі талдау нысандары. Anti-конформацияда цитозинмен, syn-де Hoogsteen тәрізді байланыспен аденинмен жұптасады. Қате түзетілмей келесі репликацияға өтсе, трансверсия бекінуі мүмкін:
Бұл ықтимал жол, әр тотыққан гуаниннің міндетті тағдыры емес. BER зақымды жояды, молекула ыдырайды немесе қате басқа кезеңде түзетіледі. 8-OHdG өлшемі бекіген алмастыруларын өлшеуге тең емес.
Ядролық және митохондриялық аддукттарды салыстыру оқшаулауға, үлгі өңдеуде тотығуына және нормалауға сезімтал. «МтДНҚ пәлен есе көп зақымдалады» деген бір коэффициент адамға тұрақты емес. Тотығу маркері жеке өзі ауруды не қартаю жылдамдығын анықтамайды.
Ішкі мембрана тыныс кешендерін ұйымдастыратын кардиолипин тәрізді липидтерге бай. Ацил тізбектерінің құрамы тін мен жағдайға байланысты. Полиқанықпаған май қышқылдары тотығып, гидропероксидтер мен екіншілік электрофилдерді түзетін тізбекті реакцияларды бастайды. Малондиальдегид MDA — , 4-гидроксиноненаль 4-HNE — . Қысқа өмірлі гидроксил радикалынан өзгеше, олар жергілікті тотығу салдарын басқа нысанаға жеткізеді.
MDA гуаниннің аддуктын түзеді, 4-HNE ақуыз бен нуклеин қышқылдарын өзгертеді. Полимеразаға кедергі, қате оқу және мембрана ферменттеріне әсер болуы мүмкін. Нәтиже құрылым мен жоюға байланысты, әр өзгеріс POLG-ны толық міндетті бұғаттамайды. Каталаза аздығы альдегид метаболизмі жоқ деген сөз емес: ол пероксидті ыдыратады, альдегидтер басқа ферменттер және глутатионмен залалсызданады.
Липид пен ДНҚ зақымы қызметті өзара нашарлатуы мүмкін, бірақ аддукт бір ауруға тән емес. Е витамині және антиоксиданттық емнің шектеулері нутрициялық контекст береді: липид қорғанысы, маркер өзгерісі және клиникалық оқиғаны болдырмау әртүрлі дәлел қажет етеді.
Ірі делециялар митохондриялық миопатияда және қартаю кезіндегі жеке клондарда сипатталған. Common deletion 4977 жұпты жояды; rCRS шекаралары шамамен 8470–13447 және 13 нуклеотидтік ACCTCCCTCACCA тікелей қайталауларымен байланысты. Үзілу белгіленуі қайталау көрінісіне тәуелді. Қалған ұзындық , бірақ қысқару тірі тінде әмбебап репликациялық артықшылықты дәлелдемейді (Holt et al., 1988).
| Делеция аймағы | Бұзылуы | Неліктен бір ақуызбен шектелмейді |
|---|---|---|
| ATP8/ATP6 | Кодтау бөліктері мен қабаттасу | V кешен бөліктерінің қалыптасуы бұзылады |
| CO3 | Кодтау тізбегі жойылады | IV бөлігі зақымданады |
| ND3, ND4L, ND4 және ND5 бөлігі | Тізбектер жоғалады/үзіледі | I кешенге әсер етеді |
| Бес тРНҚ | Трансляция элементтері жоғалады | Бірнеше ақуыз синтезі бұзылады |
Сырғу моделі репликацияда қайталанудың алыстағы қайталанумен қате түйісіп, аралық сегменттің жоғалуын ұсынады. Қайталаулар, айырдың тоқтауы және зақымдалған молекулаларды өңдеу қатыса алады. Әртүрлі делециялар бір жолмен пайда болуға міндетті емес; клон басымдығы түзілу, репликация, жою және таралуға тәуелді.
Митохондрияларда негіздік эксцизиялық репарация BER бар. OGG1 8-оксогуанинді, MUTYH тотыққан гуанинге қате жұптасқан аденинді, UNG1 урацилді өңдейді. Негіз жойылған соң AP-сайт APE1 арқылы өңделеді, кейін синтез бен лигирлеу керек. Ерекшелік, импорт және субстрат күйі бір тәжірибеден барлық тінге көшірілген әмбебап -нен маңызды (Bogenhagen, 1999).
POLG синтез және экзонуклеазалық түзету жасайды. Каталитикалық суббірлік POLG2-мен әрекеттеседі; TWINKLE, митохондриялық SSB және теңгерімді dNTP қажет. LIG3 аяқтайды; ядролық кешеннен өзгеше, митохондриялық лигаза III міндетті XRCC1 қаңқалық серіктесін қажет етпейді (Simsek et al., 2011). Ұзын жамаулы BER-де ығысқан тізбекті FEN1/DNA2 өңдеуі қарастырылады.
Ядродағы толық канондық NER митохондрияда дәл сондай түрде анықталмаған. Бұл BER-ден тыс барлық бақылаудың жоқтығы емес. Үзіліс өңдеу мен ықтимал рекомбинация модельдерде зерттеледі; зақымданған ДНҚ ыдырайды, органелла митофагиямен кетеді. Сондықтан «репарациялық тұйық» молекула және органелла ауысуымен үйлесетін жүйені тым қатаң сипаттайды.
Ядролық POLG A467T/W748S патогенді варианттары қолдауды бұза алады, бірақ әсері генотип пен клиникаға тәуелді. Бұл бар молекуланың химиялық зақымынан бөлек. «Мутация жылдамдығын» салыстырғанда тұқым қуалайтын алмастыру, сомалық вариант, репликациялық қате немесе зақым негіз үлесі екенін анықтау қажет. Бір көбейткіш олардың бәріне жарамайды.
Көшірме саны жасушалар арасында өзгереді, даму, бейімделу мен ауру кезінде ауысады. Энергия қажет тінде пул үлкен, ооцитте әсіресе көп. Әдіс пен күйсіз тұрақты «бір жасушаға» сан жалған дәлдік береді. Нуклеоид, органелла, жасуша және тін бөлек деңгей, әрқайсысы басқа құрам бағасын береді.
Гетероплазмия — варианттардың қатар болуы; жеке жағдайы мутант пен жабайы типтің қоспасы. Гомоплазмия бір вариант басымдығы, міндетті сау тізбек емес. Екі компонент үшін:
пайызбен, 0–1 өлшемсіз үлеспен берілген. Сақталған саны пайыз қамтымайтын ақпарат береді. Бірдей , бірақ жалпы саны мен АТФ қажеті әртүрлі жасушалардың резерві өзгеше болуы мүмкін.
Бөлінуде кездейсоқ көшірме/органелла таралуы ұрпақ құрамын өзгертеді — репликативтік сегрегация. Постмитоздық тінде ДНҚ айналымы жалғасып, клон жасуша бөлінбей-ақ өседі. Дрейф, іріктеу, желі және жою бірігіп әсер етеді. Бір бұлшықет талшығындағы өсу барлық тіндегі артықшылық емес (Chinnery және Turnbull, 1999).
MFN1/2, OPA1 бірігуі мен DRP1 бөлінуі желіні өзгертеді. Компонент алмасуы және комплементация аралас пул тынысын сақтайды, бірақ барлық нуклеоид/өнімнің толық еркін араласуын білдірмейді. Варианттар әр буынды бұзады; бір рецессивтік ереже жоқ.
Сақталған функционалдық ресурс ағымдағы қажетке жетпегенде шек туындайды. Ол вариант, абсолютті саны, трансляция, жиналу, метаболизм және жүктемеге байланысты. Жасуша линиясы/отбасы көрсеткіші барлық делеция, тРНҚ немесе ATP6 үшін диагностикалық шек емес (Rossignol et al., 2003).
Сызықтық емес жауаптың феноменологиялық үлгісі:
шартты функционалдық ағын, таңдалған шек, қисық пішіні. Үлгі резерв пен кейінгі төмендеуді түсіндіреді, пациент АТФ-ының валидтелген калькуляторы емес. Толық комплементация, метаболизм және тін қисықтары қамтылмаған. Нақты тиісті жүйе дерегіне сүйенуі керек.
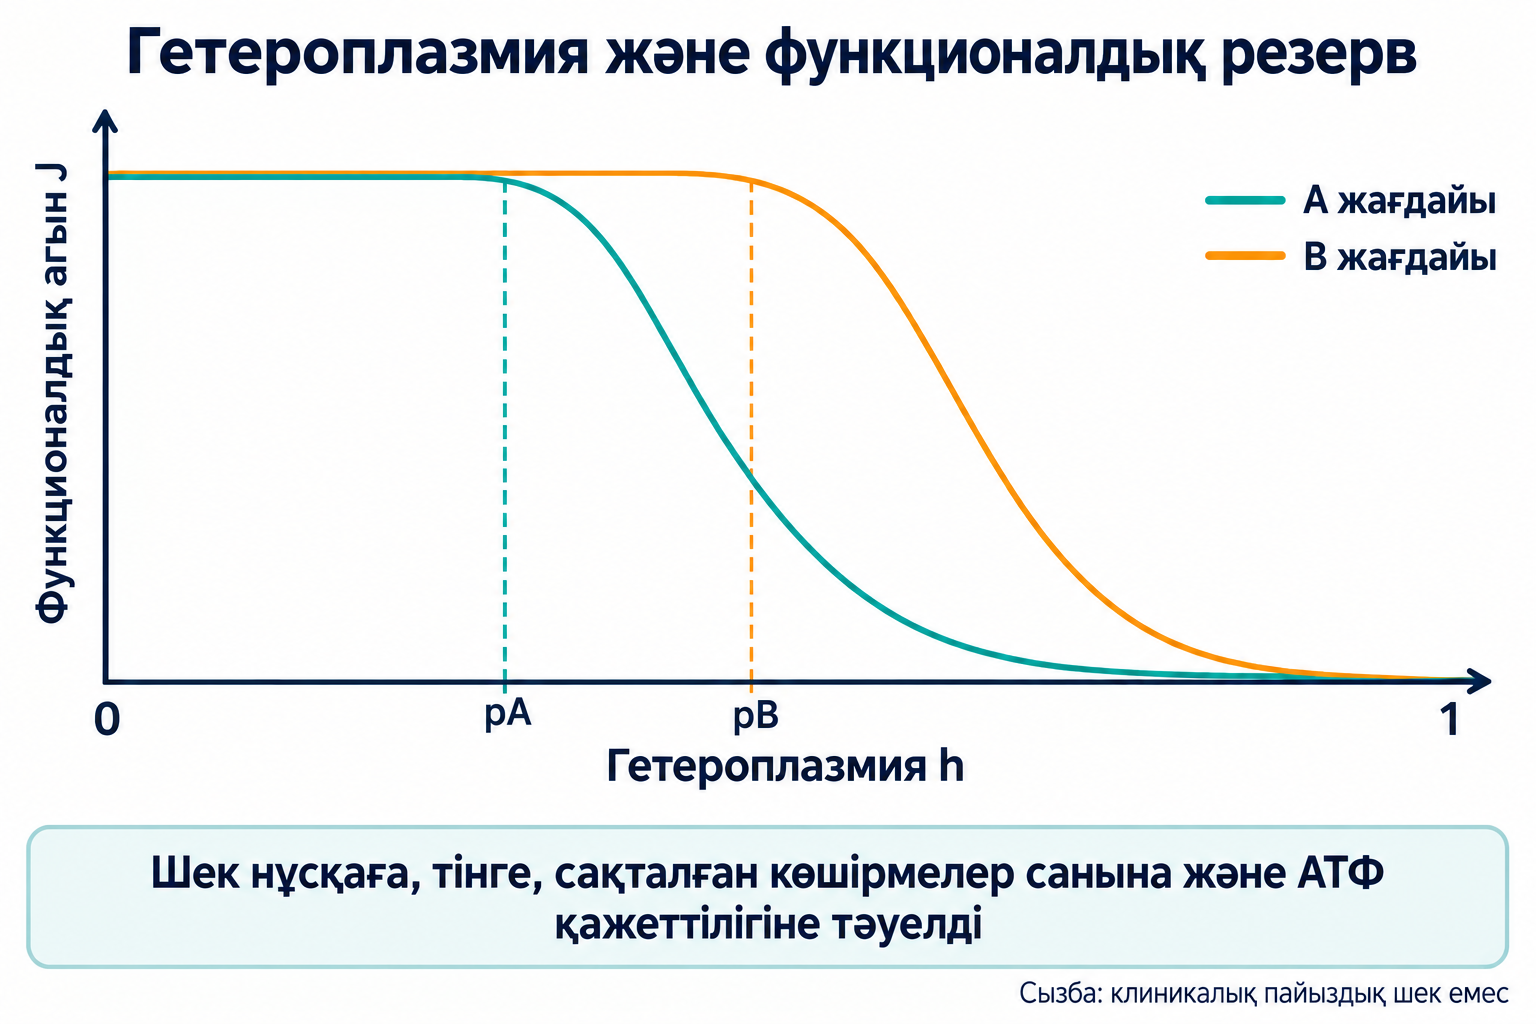
1-сурет. Бірдей гетероплазмия әртүрлі резервпен қатар жүреді. Шек вариант пен тінге байланысты; сызбалық қисықтар клиникалық пайыздық шек бермейді.
Жүйке жүйесі, торқабық, миокард, қаңқа бұлшықеті, бүйрек түтікшелері мен эндокриндік жасушалар OXPHOS бұзылуына сезімтал. Қажеттілік, қуат қоры, отын ауысуы және зақым таралуы бірлеседі. Бір пайызда барлық мүшелердің міндетті «істен шығу» реті жоқ.
Нейронда АТФ аздығы градиент, Na⁺/K⁺-ATPаза және медиаторларға, жүректе жиырылу мен электр тұрақтылығына әсер етеді. Бүйрек реабсорбциясы энергияға тәуелді; β-жасушада метаболизм инсулин секрециясына байланысты. Бұл ықтимал көріністерді түсіндіреді, бір симптомнан диагноз қоймайды.
Тін орташа саны жоғары мутантты клондарды жасырады. RRF жыртық-қызыл талшықтары қалыптан тыс митохондрия жиналуын, COX-теріс бөліктер IV белсенділік аздығын көрсетеді. Морфология мен молекула қажет, бір вариантты бірмәнді көрсетпейді.
MT-TL1-дегі MELAS және диабет/кереңдік MIDD қоса кең спектрмен байланысты. MT-TK MERRF кезінде талқыланады. Тіндік үлес, жас, ядролық фон және өзге факторлар әркелкілікті тудырады; синдром атауы әр үлгіге бір пайыз бермейді (Wallace, 1999; Chinnery және Turnbull, 1999).
MT-ATP6 — Leu156Arg, — Leu156Pro; олар бір алмастыру емес. Кей варианттың жоғары жүктемесі NARP немесе аналық митохондриялық Лей синдромы сияқты ауыр спектрмен байланысты, бірақ оқулық пайыздары клиникалық бағалауды алмастырмайды.
Кернс–Сейр мен созылмалы үдемелі сыртқы офтальмоплегия жалғыз ірі делециямен байланысты болуы мүмкін. 4977 жұп мысал, барлық жағдайдың міндетті себебі емес. Ядролық гендер ұқсас қолдау бұзылуын береді. Митохондриялық ауру бір аналық вариант ауруынан кең.
Harman молекулалық зақым жиналуын жасқа байланысты дисфункциямен байланыстырды; митохондриялық нұсқа органелланы тотықтырғыш көзі әрі нысанасы деп қарастырды. Классикалық шеңбер гипотеза ретінде айтылады: ROS ДНҚ-ны зақымдайды, мутация тізбекті бұзады, ақаулы тізбек ROS-ты арттырады. Бұл тексерілетін сұрақ туғызады, бірақ әр вариант міндетті түрде тотығуды күшейтеді деген дәлел емес (Harman, 1956; Wallace, 1999).
Сынау үшін тізбек, OXPHOS, ROS, антиоксиданттық қорғаныс және жасуша айналымын бөлек өлшеу керек. Бір маркер өсуі барлық себептік бағытты көрсетпейді. Керісінше, оттек тұтыну төмендегенде ауыр энергетикалық ақауға қарамастан кей күйде ROS азаяды. Әмбебап өздігінен үдейтін ілмек тым қарапайым.
Trifunovic және Kujoth POLG экзонуклеазалық түзетуі ақаулы тышқандарда жасанды жоғары мутация жүктемесі ерте қартаюға ұқсас белгілермен бірге болатынын көрсетті. моделінде тін қызметінің бұзылуы, салмақ жоғалуы және басқа өзгерістер болды; Kujoth апоптоздың өсуімен байланыстырды. Болжанған міндетті тотығу стрессінің өсуі толық фенотипті түсіндірмеді (Trifunovic et al., 2004; Kujoth et al., 2005).
Бұл ROS ілмегінің жалғыз міндетті механизм екенін күмәнға қояды. Бірақ жасанды ақаулы жануар қалыпты қартайған адамға тең емес: спектр, жиналу жылдамдығы және таралуы басқа. Тәжірибе геномды қолдаудың ауыр бұзылуы тінге зиян екенін көрсетеді, барлық адам қартаюындағы мтДНҚ үлесін анықтамайды.
Дәл секвенирлеу сирек нақты варианттарды техникалық қатеден ажыратады. Kennedy et al. жасқа байланысты көп алмастыру транзиция екенін, 8-оксогуаниннің қарапайым моделіндегі басым трансверсия өсіміне сәйкес келмейтінін көрсетті. Спектр репликациялық қателер мен негіз өзгерістерінің маңызды рөліне үйлеседі, бірақ әр алмастырудың бір химиялық себебін белгілемейді (Kennedy et al., 2013).
Мутациялар протеостаз, стресс, апоптоз және жасушаның тінді сақтау қабілетіне әсер етеді. Дің және прогенитор популяцияларындағы әсер модельдерде зерттеледі, барлық популяцияның жасқа байланысты сарқылуының жалғыз себебі емес. Мүше орташа жүктемесі төмен болса да, шағын COX-теріс клондарда жоғары болуы мүмкін.
Қазіргі түсіндіру түзілу, клондық өсу, функция және жасуша жоюды байланысты, бірақ бөлек процестер деп қарайды. Редокс-зақым биологиядан шығарылмайды. Бір аддукт немесе вариант әмбебап биологиялық жас сағаты болмайды.
Қалыпты компартменттегі өз ДНҚ-сы қабыну стимулына тең емес. Тиісті тану жүйесіне жеткенде DAMP, зақымға байланысты молекулалық үлгі мәніне ие болады. Пішін, тотығу, мөлшер, орны, қабылдану және жою маңызды. Бірдей сыртқы концентрация әр жасушада бірдей жауап бермейді (West және Shadel, 2017).
Бактериялық шығу CpG/TLR9 қызығушылығын түсіндіреді. Бірақ әр ядролық CpG метилденген, әр мтДНҚ мүлде метилденбеген деу дұрыс емес: модификация өлшемдері әдістемелік күрделі. cGAS қолжетімді қос тізбекті ДНҚ-ны нақты CpG талап етпей таниды. Сондықтан бұл уәж барлық иммундық жолды түсіндірмейді.
Мембрана тұтастығы, өткізгіштік және апоптоз түрлі шығу жолдарын береді. mPTP шағын молекула өткізгіштігімен байланысты, толық геномның дәлелденген каналы емес. Ісіну, мембрана бұзылуы және фрагменттер нақты модельдерде қаралады. McArthur BAX/BAK макропоралары ішкі мембрана томпаюы мен мтДНҚ шығуына мүмкіндік беретінін көрсетті. Бұл барлық дисфункцияның міндетті реті емес (McArthur et al., 2018).
Қос тізбекті ДНҚ cGAS-қа қолжетімді болса, фермент АТФ пен GTP-ден циклдік динуклеотид жасайды:
— пирофосфат; аралас 2′–5′, 3′–5′ байланыстар өнімді сызықтық олигонуклеотидтен ажыратады. cGAMP эндоплазмалық тор мембранасының STING адаптерін белсендіреді. Орнының өзгеруі, соның ішінде Гольджиге жылжу, TBK1 мен IRF3 фосфорлануын қолдайды (Sun et al., 2013; West et al., 2015).
IRF3 I типті интерферон және ISG индукциясына, басқа тармақ NF-κB-ге қатысады. ДНҚ шығуы вируссыз-ақ вирусқа қарсы тәрізді бағдарламаны іске қоса алады. Бірақ IFN, CXCL10 және басқа медиаторлар жасуша мен жол күйіне тәуелді. Барлық цитокиннің бірдей босап шығуы міндетті емес.
TLR9 эндосомада жұмыс істейді. Сыртқы ДНҚ қабылдану арқылы сол жерге жетуі тиіс; жеткізусіз «цитозоль мтДНҚ → TLR9» жебесі дұрыс емес. MyD88, IRAK4/IRAK1, TRAF6, IKK IκB және NF-κB-ні реттейді.
Тиісті контексте TNF, IL-6 сияқты медиатор транскрипциясы өседі. ДНҚ химиясы, қаптауы, эндосома функциясы және рецептор экспрессиясы жауапты өзгертеді. TLR9, cGAS және сыртқы мөлшер — әртүрлі деңгейлер, ауыстырылатын диагностикалық маркерлер емес.
Shimada ox-мтДНҚ-ны өз экспериментінде NLRP3 белсенуімен байланыстырды. Бұл стресс-қабыну көпірі маңызды, бірақ «LRR доменінің әмбебап тікелей лиганды» деу дәлелден тыс. NLRP3 бірнеше стресс оқиғасын біріктіреді; прайминг, K⁺ шығуы сияқты иондық өзгерістер және күйдің жеке маңызы бар (Shimada et al., 2012).
ASC-мен жиналудан кейін каспаза-1 pro-IL-1β/pro-IL-18 өңдейді. GSDMD үзілуі мембраналық пора мен пироптоз беруі мүмкін. Цитокин жетілуі мен өлім байланысты, бірақ ox-ДНҚ табылған сайын міндетті емес. TLR-прайминг мүмкін, жалғыз міндетті TLR9 кірісі жоқ.
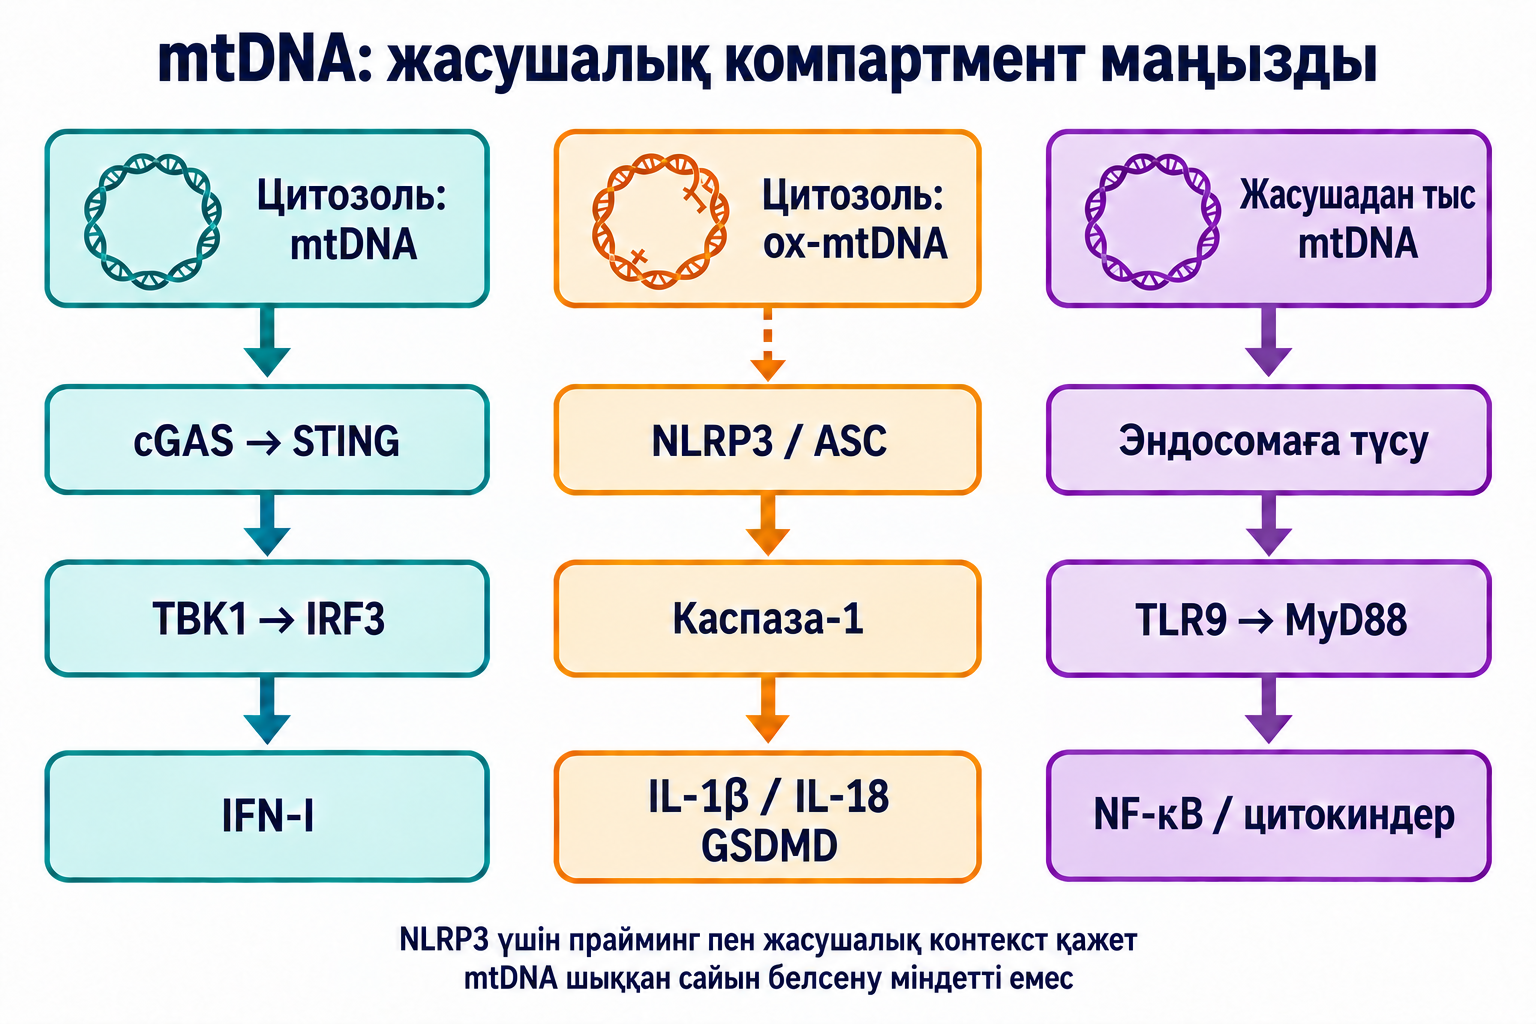
2-сурет. Цитозольдік, тотыққан және эндосомаға қабылданған сыртқы ДНҚ әртүрлі жолмен байланысты. Үзік жебе NLRP3 байланысының контекстке тәуелділігін көрсетеді, әр фрагменттің әмбебап тікелей танылуын емес.
ccf-mtDNA бос немесе сыртқы құрылымдарда болады. Мөлшер шығу, тасымалдау, ыдырау және клиренсті біріктіреді. Плазма дайындау, қалған жасуша/тромбоцит, экстракция, амплификация нысанасы және qPCR/ddPCR нормалау қатты әсер етеді. Көшірме саны хаттамасыз түсіндірілмейді.
Қабыну, жүрек-қантамыр және нейродегенерациямен байланысы зерттеледі, бірақ көлемі мен бағыты ауру/үлгіге тәуелді. Плазма мен жұлын-ми сұйықтығы бөлек орта; бірінде өсуі екіншісін болжамайды. Ауырлықпен корреляция әр көріністің ДНҚ-дан туатынын дәлелдемейді.
Inflammaging үшін зақым, жою және иммундық реттеудің тұрақты теңгерімсіздігі маңызды. Зерттеу байланысы ccf-mtDNA-ны жеке қартаю тесті, Альцгеймер диагнозы немесе STING блокаторы көрсетімі етпейді. Сигнал саны мен жол жұмысы бөлек бағаланады.
Трифенилфосфоний жалғау электр потенциалы арқылы молекуланы митохондрияда байытады. Заряд таралуы мен липофильдік биқабаттан өтуді жеңілдетеді. Бұл C/E витамині немесе ресвератрол мүлде кірмейді деген сөз емес; қасиеттері әртүрлі, абсолютті өткізбестік клиникалық шектеулерді түсіндірмейді (Smith et al., 1999; Skulachev, 2007).
келісімімен идеал бірвалентті катион:
Теріс матрикс потенциалы оң жиналу көрсеткішін береді. 37 °C маңында 60 мВ өзгеріс идеал қатынасты шамамен он есе өзгертеді. Нақты әсер байланысу, мембрана қолжетімділігі, кинетика және метаболизмге тәуелді. Екі мембрана потенциалын модельде біріктіреді; қарама-қарсы таңбамен теріс мән енгізу бір уақытта байытуды болжамайды.
MitoQ құрамында убихинон және TPP-линкер бар, тотықсызданған түрі липидті қорғай алады. SkQ1 пластохинон пайдаланады. Анти-/прооксиданттық, мембрана әсері мен төзімділік концентрацияға тәуелді. Қатты деполяризация ең зақымданған органеллаға жиналуды азайтады. Нысаналы жеткізу толық селективтік, уытсыздық немесе бекіген мутация репарациясы емес.
Бастапқы мәтіндегі сандық тамырлық нәтиже сәйкес клиникалық жарияланымсыз ДНҚ қорғау дәлелі ретінде қолданылмайды. Нәтиже мен геном өлшемдерін бөлек растау қажет. Коэнзим Q10 және полифенолдар тыныс тізбегінің контекстін береді, MitoQ гетероплазмияны түзетеді деп дәлелдемейді.
Полярланған органеллада PINK1 импорты және PARL қатысатын өңдеу сыртқы мембранадағы санын төмен ұстайды. Импорт бұзылса, PINK1 жиналып, Ser65 убиквитинін фосфорлайды, Parkin-ді тартып белсендіреді. Нысаналарды убиквитиндеу және OPTN/NDP52 рецепторлары LC3 мен аутофагосомаға қосады; TBK1 реттейді (Pickrell және Youle, 2015; Lazarou et al., 2015).
Лизосомалық жеткізу органелланы жоя алады, бірақ PINK1 мутанттың нақты пайызын сезбейді. Әмбебап үлес немесе толық потенциал құлауы міндетті емес. BNIP3, NIX, FUNDC1 гипоксия/дамуда балама байланыстар береді. Әр жол тін мен стимулға тәуелді.
Уролитин A сапа және митофагиямен байланысты зерттеледі. Andreux адамдардағы төзімділік/молекулалық жауапты, Singh орта жастағы бұлшықет қызметі мен маркерлерді қарастырды. Бұл мутантты таңдап жою, пациентте тұрақты үлес төмендеуі немесе MELAS емі емес. Экспрессия мен метаболит барлық тіндегі ағынның тікелей өлшемі емес (Andreux et al., 2019; Singh et al., 2022).
Спермидин модельдегі аутофагия және өмір ұзақтығына қатысты зерттеледі; Eisenberg осы контекстті қолдайды. Ацетилдену/EP300 кейінгі механизмдерін бір ерте жұмысқа түгел жатқызбай, жарияланым мен шарттарды ажырату керек. Жалпы аутофагия генотип іріктеуін кепілдемейді. Адам геномын «жасарту» немесе әмбебап доза дәлелденбеген.
Энергия күйі AMPK-ге әсер етеді; Thr172 фосфорлануы тапшылықты бейімделу бағдарламасымен байланыстырады. PGC-1α транскрипциялық коактиватор, NAD⁺-тәуелді SIRT1 деацетилазасы метаболизммен реттеуді жалғайды. Фосфорлану/ацетилдену желіні өзгертеді, бірақ қарапайым тізбек барлық кері байланыс пен тін ерекшелігін қамтымайды (Cantó және Auwerx, 2009).
NRF1, NRF2/GABP функция гендерін реттейді. Мұнда NRF2 — GABP, антиоксиданттық NFE2L2/Nrf2 емес. TFAM POLRMT/TFB2M-мен қаптау мен транскрипцияға қатысады, геномды жалғыз өзі екі еселемейді. Репликация, мембрана биогенезі, импорт және жиналу үйлеседі (Scarpulla, 2011).
Геном саны өскенде салыстырмалы үлес өзгермесе де абсолютті сақталған көшірмелер көбейеді. Мутанттар да өседі: жабайы типтің басым репликациясы бөлек дәлел қажет. B3 витамині және NAD-тәуелді метаболизм кофактор контекстін береді; тәуелді ферменттің болуы әр прекурсор үлесті төмендетіп, тізбекті қайтарады дегенді білдірмейді.
Аэробтық және күш жаттығулары биогенез, сапа және бұлшықет мүмкіндігін өзгертеді. Энергия сигналдары, протеостаз және айналым қатысады; төзімділік жақсаруы нақты мутант үлесінің төмендеуі емес. Резерв пен генотипті бөлек өлшеу керек.
Бұлшықет прогениторлары әрдайым тек «таза» ДНҚ ұстайды немесе мутантты міндетті алмастырады деуге болмайды. Ауруда бағдарлама жағдай мен клиникалық бағалауға тәуелді; HIIT молекулалық схемадан әмбебап ем болмайды. Вариант, тін және ұзақ жауапсыз тікелей түзету уәде етілмейді.
Нысаналы нуклеазалар тізбекті танитын ақуыз кешенін жеткізеді. mitoZFN мырыш саусақтарын, mitoTALEN TALE домендерін қолданады; FokI тиісті конфигурацияда кеседі. Мутантты таңдаулы зақымдау ыдырау мен сақталған пулды байытуға әкеледі. Бұл әр кесілген молекуланы жөндеу емес, популяция өзгерісі.
Gammage TALEN емес mtZFN қолданды: жасуша моделінде қайталанған араласу шамамен 80%-дан 7%-ға ауыстырды. Жалпы көшірме сарқылуы мен экспрессия дозасы талқыланды. Сол тәжірибе пациентте MELAS/MERRF түзетілгенін көрсетпейді (Gammage et al., 2016).
Қалпына келтіру үшін сақталған пул және селективтік қажет. Гомоплазмиялық мутантты жою жаңа қалыпты тізбек жасамайды. Мүше жеткізуі, қажетсіз кесу, иммундық реакция және ұзақ қауіпсіздік клиникаға көшіруді шектейді.
DdCBE DddA бактериялық цитидиндеаминазасының бөлінген бөліктерін ақуыз тануы арқылы бағыттап, урацил-ДНҚ-гликозилаза ингибиторын қолданады. Mok CRISPR-сіз қос тізбекті үзіліссіз редакциялауды көрсетті. Бастапқы басты өзгеріс , кез келген негіз алмастыруы емес (Mok et al., 2020).
Ақуыз жеткізу guide RNA мәселесін айналып өтеді, бірақ әмбебап/қауіпсіз етпейді. Тізбек контексті, жанама өзгеріс, нысанадан тыс редакция мен жеткізу маңызды. осы жүйеде -ны A-ға тікелей қайтармайды. Зерттеу мүмкіндігі стандартты «митогеном жөндеуі» үшін клиникалық дәлелді алмастырмайды.
Маркер сұрақ пен әдісті анықтайды, препаратты автоматты тағайындамайды. Кесте бастапқы процестерді сақтап, клиникалық уәдені түсіндіру шектеуімен алмастырады.
| Процесс / өлшем | Механизм | Өлшенетіні | Шектеуі |
|---|---|---|---|
| 8-oxoG/8-OHdG | Гуанин тотығуы, қате жұп | ДНҚ аддукті/биосұйықтық өнімі | Бекіген мутация не автоматты митохондриялық орын емес |
| , 4-HNE | Липидтің екіншілік өнімдері | Аддукт, ақуыз/қышқыл өзгерісі | Мүше/ауруға тән емес, бақылау керек |
| 4977 жұп делециясы | Ген/тРНҚ жоғалуы | Үлес және тіндік таралу | Жалғыз шек емес, барлық KSS/CPEO емес |
| MT-TL1 тРНҚ | Вариант және үлгі үлесі | Қан тінге тең емес, MELAS/MIDD бір пайыз емес | |
| MT-ATP6, Leu156Arg | Вариант/жүктеме | , Leu156Pro-дан ажырату | |
| POLG түзету ақауы | Қолдау қатесі | Ядролық генотип, сарқылу, көптеген өзгеріс | Мутатор тышқан кәдімгі адам қартаюы емес |
| Цитозоль мтДНҚ | cGAS–STING қолжетімділігі | Орны/сигнал | Плазма жол белсенділігін дәлелдемейді |
| ox-мтДНҚ/NLRP3 | Контекстік қабыну | Жиналу, каспаза-1, жетілген цитокин | Прайминг/функция керек, әмбебап лиганд емес |
| ccf-mtDNA | Шығу, тасымал, жою | Стандарт хаттамадағы көшірме | Жеке диагноз, жас не блокатор көрсетімі емес |
Диагноз фенотип, отбасы және зақым мүшелерінен басталады. Аналық тұқымқуалау мтДНҚ-ны көрсетеді, ядролық себепте басқа жолдар бар; анамнез жоқтығы ауруды шығармайды. Әдіс нақты гипотезаға жауап береді, әмбебап «митохондриялық жас» панеліне емес.
Лактат/пируват алу, өңдеу, жаттығу және шарттарға тәуелді. Қатынасының барлық концентрацияға ортақ шегі жоқ. CK, AST/ALT, миоглобин және органикалық қышқыл көмектеседі, вариантқа тән емес. Жоғары жалғыз нәтиже диагнозды растамайды, қалыптысы барлық ауруды жоққа шығармайды.
Генетика геном секвенирлеу, делеция/дупликация және көрсетілген POLG/TWNK/DGUOK талдауын қамтиды. Сирек гетероплазмия валидтелген анықтау шегін, қате бақылауын және NUMT ажыратуды қажет етеді. Терең оқу жалғыз дәлдік кепілі емес. ddPCR нақты вариант үлесін не санын нысана/нормалауға қарай нақтылайды.
Тін таңдау маңызды. Қан кей вариантта орган жүктемесін аз бағалайды; бір ортадағы теріс нәтиже мозаицизмді шығармайды. Зәр эпителийі немесе бұлшықет сұрақ бойынша, бәріне міндетті емес. Зәр 8-OHdG, hsCRP, IL-6, ccf-mtDNA молекулалық диагнозды алмастырмайды, әр симптом себебін немесе нақты мутацияны көрсетпейді.
Көрсетімде биопсия, RRF және COX/SDH бояуы толықтырады. Респирометрия берілген субстрат/шартта тынысты өлшейді; State 3/State 4, RCR протоколмен мағыналы. Морфология/функция генетиканы алмастырмайды; инвазивті тексеру қартаю байланысы үшін күнделікті алдын алу скринингіне айналмайды.
Тұрақтылық тізбекті қолдау, жеткілікті функционалдық көшірме, желі және уақтылы жоюға тәуелді. Байланысты процестердің өлшенетін нәтижелері бөлек. Антиоксидант бекіген вариантты жөндемейді; митофагия іріктеуді кепілдемейді; биогенез салыстырмалы үлесті міндетті азайтпайды; функция жақсаруы тізбек өзгерісін дәлелдемейді.
Қартаю зерттеуі әмбебап ROS шеңберінің шегін, иммундық биология компартменттен шығудың маңызын көрсетті. Екеуі де барлық жас/қабыну ауруын жалғыз түсіндірмейді. Негізді тұжырым нәтиже, модель, тін және клиникалық сұрақты байланыстырып, ассоциация, механизм және расталған емді ажыратады.
Бұл берілген мәтін мен библиографияға негізделген нарративтік ғылыми талдау. Алдын ала тіркелген іздеуі бар жүйелі шолу емес, формалды GRADE не тәуелсіз клиникалық сараптама туралы мәлімдемейді. 2026 жылғы 8 қазанда редакция кезінде TFAM, mtZFN, Kennedy, уролитин A жазбалары және митохондриялық LIG3/XRCC1 айырмасы таңдамалы салыстырылды; жалпы жаңа әдебиет іздеу не толық сілтеме аудиті жүргізілген жоқ. Дәлел деңгейі модель мен нәтижеге қарай сөзбен сипатталады, ем ұсынысына айналмайды.
Бір шек жоқ. Вариант, тін, сақталған көшірмелер, энергия қажеті және зақым жасушалар таралуы маңызды.
Олар зақым/айналым ДНҚ-сын зерттейді, жеке өздері қартаю жылдамдығын немесе нақты ауруды анықтамайды.
Маркер мен функция өзгерісі мутант геномды таңдаулы жою дәлелі емес. Вариант/тін өлшемі бөлек керек.
Жоқ. Нуклеазалар пулды өзгертеді, DdCBE химиялық шектеулі; жеткізу, сан және қажетсіз өзгеріс бағалануы тиіс.