Митохондриальная ДНК: повреждение, гетероплазмия и врождённый иммунитет
Архитектура митогенома, TFAM, mtROS, BER/POLG, делеции и тканевые пороги; модели старения, cGAS–STING/TLR9/NLRP3, митофагия, биогенез и ограничения редактирования мтДНК.
Архитектура митогенома, TFAM, mtROS, BER/POLG, делеции и тканевые пороги; модели старения, cGAS–STING/TLR9/NLRP3, митофагия, биогенез и ограничения редактирования мтДНК.
Митохондриальная ДНК (мтДНК) участвует в клеточной энергетике одновременно как генетическая матрица, популяция множества копий и потенциальный сигнал опасности. Повреждение основания ещё не означает закреплённую мутацию; доля мутантных копий ещё не определяет функцию ткани; обнаружение мтДНК в крови ещё не доказывает активацию воспалительного рецептора. Эти различия позволяют связать биохимию окислительного фосфорилирования с наследственными болезнями, соматическим мозаицизмом и старением, не превращая молекулярную гипотезу в готовый лечебный протокол.
Разбор последовательно рассматривает устройство человеческого митогенома, редокс-повреждения и репарацию, динамику гетероплазмии, эксперименты по старению, иммунное распознавание и способы воздействия на митохондриальный пул. Важно различать результаты структурных, клеточных и животных исследований и клинические исходы: направленная доставка антиоксиданта, усиление митофагии и изменение последовательности ДНК решают разные задачи.
Митохондрии происходят от бактериального эндосимбионта, а основная часть его генетического аппарата в ходе эволюции была утрачена или перенесена в ядро. Альфа-протеобактериальное происхождение органеллы и связь эукариотического хозяина с архейной линией поддерживаются сравнительной биологией. Однако конкретный вид хозяина, последовательность событий и точная дата симбиоза реконструируются гипотетически; их нельзя описывать как непосредственно наблюдавшееся поглощение известного современного микроорганизма.
Подавляющее большинство митохондриальных белков человека кодируется ядерными генами. После синтеза в цитозоле предшественники направляются к органелле, проходят через комплекс внешней мембраны TOM и далее используют различные системы сортировки, включая TIM23 и TIM22. Импорт, мембранная вставка и сборка многосубъединичных комплексов должны быть согласованы с синтезом небольшой группы белков на митохондриальных рибосомах. Поэтому сохранение собственного генома не делает митохондрию автономным организмом: её функция зависит от постоянного взаимодействия двух генетических систем (Falkenberg et al., 2007).
Гипотеза CoRR — совместной локализации генов и редокс-регуляции — связывает сохранение локальной экспрессии с потребностью реагировать на состояние дыхательной цепи. Другое объяснение опирается на гидрофобность и особенности сборки мембранных субъединиц, затрудняющие перенос их синтеза в цитозоль. Эти объяснения дополняют друг друга и остаются эволюционными моделями; они не доказывают, что импорт любого митохондриально кодируемого полипептида физически невозможен при всех условиях.
Ревизованная Кембриджская эталонная последовательность (rCRS) человеческой мтДНК содержит 16 569 пар оснований. Это координатная система для описания вариантов, а не утверждение об одинаковой последовательности и длине генома у каждого человека. Обычно молекула представляет собой кольцевую двуцепочечную ДНК. Её тяжёлая H-цепь и лёгкая L-цепь исторически различались по плавучей плотности в денатурирующих условиях; названия связаны с асимметрией состава, а не с наличием двух разных хромосом (Anderson et al., 1981; Andrews et al., 1999).
В принятой аннотации H-цепь несёт 12 белок-кодирующих генов, обе рРНК и 14 тРНК; L-цепь — ген ND6 и восемь тРНК. Такая асимметрия важна для транскрипции и моделей репликации. При этом обозначение «кодирующая цепь» не следует смешивать с комплементарной матрицей, которую непосредственно считывает полимераза.
Основная некодирующая контрольная область проходит через условное начало круговой rCRS. С ней связаны промоторы HSP/LSP и область начала репликации H-цепи, ; начало L-цепи, , находится в другом участке генома. Контрольная область и D-петля — не точные синонимы: D-loop обозначает трёхцепочечную структуру, возникающую при удержании короткой 7S ДНК, которая вытесняет одну из родительских цепей. В структурных моделях временные одноцепочечные участки имеют особую химическую уязвимость, но из этого не следует, что вся контрольная область постоянно лишена белковой защиты.
Митогеном человека не содержит обычного набора интронов и длинных межгенных промежутков. Некоторые рамки считывания перекрываются: ATP8/ATP6 на 46 нуклеотидов, ND4L/ND4 на семь. Такая компактность означает, что повреждение одного короткого сегмента может затронуть несколько функциональных элементов. Но её нельзя напрямую переводить в фиксированную вероятность заболевания без учёта варианта и числа сохранных копий.
Транскрипция создаёт длинные полицистронные РНК. В «пунктуационной» модели тРНК обозначают многие границы, по которым процессируются соседние транскрипты: митохондриальная RNase P с белками MRPP1/2/3 участвует в формировании 5′-концов тРНК, ELAC2 — 3′-концов. Не все границы подчиняются одной схеме, и созревание РНК включает дополнительные белки, модификации и контроль стабильности. Некоторые белок-кодирующие транскрипты заканчиваются неполным стоп-сигналом T или TA; полиаденилирование РНК достраивает UAA. Это нормальная организация экспрессии, а не приобретённый дефект репарации ДНК.
В человеческой мтДНК аннотированы 37 генов: 13 белков, 22 тРНК и две рРНК. Митохондриальные рибосомы используют 12S и 16S рРНК в малой и большой субъединицах; их обозначение 55S отражает свойства седиментации комплекса, а не сумму 28S и 39S. Небольшой набор тРНК обслуживает кодоны благодаря особенностям распознавания и модификациям антикодонов. Это не означает, что любой немодифицированный U свободно спаривается с любым основанием.
| Комплекс OXPHOS | Белки, кодируемые мтДНК | Значение собственного генома |
|---|---|---|
| I, NADH:убихинон-оксидоредуктаза | ND1, ND2, ND3, ND4, ND4L, ND5, ND6 | Мембранные элементы комплекса, участвующие в сопряжении переноса электронов и протонов |
| II, сукцинатдегидрогеназа | Нет | Субъединицы кодируются ядерными генами; дефект комплекса II сам по себе не указывает на вариант мтДНК |
| III, комплекс | CYTB | Цитохром b образует важные элементы Q-цикла |
| IV, цитохром-c-оксидаза | CO1, CO2, CO3 | Центральные мембранные субъединицы; каталитические металлические центры распределены не одинаково между ними |
| V, ATP-синтаза | ATP6, ATP8 | Компоненты мембранной части комплекса, необходимые для нормальной сборки и сопряжения |
Митохондриальный генетический код отличается от стандартного: UGA кодирует триптофан, AUA — метионин; AGA/AGG в аннотации человеческого митогенома связаны с завершением трансляции. Реальный механизм терминации имеет дополнительные особенности, поэтому таблица кодонов не описывает весь процесс работы рибосомы. Поскольку тРНК используются для синтеза разных субъединиц, патогенный вариант тРНК способен нарушать несколько комплексов одновременно, даже когда он не находится внутри белок-кодирующего гена.
МтДНК упакована в нуклеоиды, включающие белки поддержания, репликации и экспрессии генома. TFAM содержит два HMG-домена, соединительный участок и C-концевую область; связывание с малой бороздкой изгибает ДНК, а структурные работы показывают U-образную конфигурацию в комплексе с промотором. Упаковка влияет на доступ полимераз и организацию транскрипции, а изменение соотношения TFAM и ДНК способно менять свойства нуклеоида (Ngo et al., 2011; Rubio-Cosials et al., 2011).
Оценки размера нуклеоидов порядка десятков — около сотни нанометров и числа копий генома в одном нуклеоиде зависят от метода и клеточного состояния. Многие нуклеоиды содержат небольшое число молекул, нередко одну, но это не универсальная неизменная стехиометрия. Аналогично, оценки плотности связывания TFAM в препарате или модели нельзя безоговорочно применять ко всем тканям и фазам метаболической активности.
Канонические ядерные нуклеосомы не составляют основную систему упаковки мтДНК. Тем не менее отсутствие обычного нуклеосомного массива не означает «голую ДНК»: TFAM и другие белки организуют и защищают геном. Ядерные гистоны тоже не образуют непроницаемого барьера для радикалов. Сравнение двух компартментов требует учитывать химическую экспозицию, топологию ДНК, репарацию и оборот молекул, а не только наличие гистонов.
Нуклеоиды функционально связаны с внутренней мембраной и зонами организации органеллы; обсуждаются взаимодействия с ATAD3A, MICOS и другими белковыми системами. Соседство с дыхательной цепью делает локальную редокс-среду значимой, однако пространственная близость не доказывает одинаковую дозу окислителей для каждой молекулы ДНК. Скорость образования ROS определяется субстратами, восстановленностью переносчиков, направлением потока электронов, мембранным потенциалом и состоянием антиоксидантных ферментов (Murphy, 2009).
В комплексе I различают участки, связанные с флавином, , и с убихиноном, ; в комплексе III важен участок . Супероксид комплекса I преимущественно связан с матриксом, тогда как комплекс III может высвобождать его и в матрикс, и в межмембранное пространство. Нельзя изображать весь mtROS как единый поток от всех комплексов исключительно к мтДНК или считать долю «утечки электронов» постоянной величиной.
Супероксиддисмутаза SOD2 в матриксе катализирует превращение супероксида в перекись водорода:
участвует в сигнальных процессах и может удаляться пероксиредоксинами и глутатионпероксидазами, в том числе PRDX3 и GPX1; GPX4 особенно важна для восстановления липидных гидропероксидов. При наличии доступного двухвалентного железа реакция Фентона создаёт высокореактивный гидроксильный радикал:
Из-за высокой реактивности повреждение зависит от места его образования и соседних мишеней. Это объясняет важность локальной химии, но не задаёт универсального расстояния диффузии или порога ROS, одинакового для клетки, ткани и живого организма.
Окисление гуанина может образовывать 8-оксогуанин; при описании дезоксинуклеозида употребляют 8-oxo-dG и 8-OHdG. Основание в составе ДНК и его свободный продукт в моче — разные аналитические объекты. 8-оксогуанин сохраняет возможность спаривания с цитозином в anti-конформации, но в syn-конформации способен образовать пару с аденином с участием взаимодействий типа Хугстина. Если такое ошибочное включение не исправлено и проходит следующий цикл репликации, может закрепиться трансверсия:
Это возможный маршрут, а не обязательная судьба каждого окисленного гуанина. Повреждение может быть удалено BER, молекула — деградировать, а ошибка — корректироваться на другом этапе. Измерение 8-OHdG не равно измерению фиксированных замен .
Сравнения окислительных аддуктов в ядерной и митохондриальной ДНК чувствительны к способу выделения, окислению образца при обработке и нормализации. Поэтому один коэффициент «мтДНК повреждена во столько-то раз сильнее» нельзя считать постоянной характеристикой человека. По той же причине лабораторный маркер окисления не даёт самостоятельного диагноза митохондриальной болезни или темпа старения.
Внутренняя мембрана богата специализированными липидами, включая кардиолипин, который поддерживает организацию дыхательных комплексов. Состав его ацильных цепей зависит от ткани и состояния организма. Окисление полиненасыщенных жирных кислот запускает цепные реакции с образованием липидных гидропероксидов и вторичных электрофильных продуктов. Малоновый диальдегид, MDA, имеет структуру ; 4-гидроксиноненаль, 4-HNE, — формулу . В отличие от короткоживущего гидроксильного радикала, такие продукты могут переносить последствия локального окисления на другие молекулярные мишени.
MDA способен формировать аддукт с гуанином; 4-HNE модифицирует белки и нуклеиновые кислоты. Эти изменения могут мешать работе полимеразы, вызывать ошибочное считывание и влиять на мембранные ферменты. Результат зависит от структуры аддукта и систем удаления, поэтому неверно объявлять каждую модификацию неизбежной полной блокадой POLG. Также отсутствие высокого содержания каталазы не означает отсутствия метаболизма альдегидов: каталаза расщепляет перекись, тогда как детоксикация альдегидов включает другие ферменты и глутатион-зависимые реакции.
Липидное повреждение и повреждение мтДНК могут взаимно усиливать функциональные нарушения, но конкретный аддукт не является специфическим признаком одного заболевания. Для сопоставления с нутриционными антиоксидантами полезен отдельный разбор витамина E и ограничений антиоксидантной терапии: защита липидов, изменение лабораторного маркера и предотвращение клинических событий требуют разных доказательств.
Крупные делеции мтДНК описаны при митохондриальных миопатиях и обнаруживаются в отдельных клеточных клонах при старении. Известная «common deletion» удаляет 4977 пар оснований; её границы в rCRS связывают с областью приблизительно 8470–13447 и 13-нуклеотидными прямыми повторами ACCTCCCTCACCA. Точное обозначение разрыва зависит от принятого представления повторов. Молекула после такой делеции содержит пар оснований, однако само уменьшение длины не доказывает универсального репликативного преимущества в живой ткани (Holt et al., 1988).
| Область распространённой делеции | Что нарушается | Почему эффект не ограничен одним белком |
|---|---|---|
| ATP8/ATP6 | Затрагиваются части кодирующих областей, включая перекрывающийся участок | Нарушается нормальное образование компонентов комплекса V |
| CO3 | Удаляется кодирующая последовательность | Возникает дефект компонента комплекса IV |
| ND3, ND4L, ND4 и часть ND5 | Теряются или прерываются соответствующие последовательности | Затрагивается комплекс I |
| Пять тРНК | Утрачиваются элементы аппарата трансляции | Возможны последствия для синтеза нескольких митохондриальных белков |
Упрощённая схема проскальзывания предполагает, что при репликации повторная последовательность ошибочно совмещается с удалённым повтором, а промежуточный сегмент выпадает. Повторы, остановка репликационной вилки и обработка повреждённых молекул могут участвовать в формировании делеций. Но разные делеции не обязаны возникать одним путём, а преобладание конкретного клона зависит от образования, репликации, удаления и распределения геномов.
Митохондрии обладают системами базовой эксцизионной репарации, BER. ДНК-гликозилазы распознают определённые повреждённые основания: OGG1 участвует в обработке 8-оксогуанина, MUTYH — аденина, ошибочно спаренного с окисленным гуанином, UNG1 — урацила. После удаления основания образуется AP-сайт, обрабатываемый эндонуклеазой APE1. Далее требуются восстановительный синтез и лигирование. Специфичность фермента, эффективность импорта и состояние субстрата важнее универсального численного , перенесённого из одного опыта на все ткани (Bogenhagen, 1999).
POLG выполняет синтез в направлении и коррекцию ошибок благодаря экзонуклеазной активности . Каталитическая субъединица POLG взаимодействует со вспомогательными субъединицами POLG2; для нормального поддержания генома также нужны хеликаза TWINKLE, митохондриальный SSB и сбалансированный пул dNTP. Завершение репарации связано с LIG3. В отличие от ядерного комплекса, митохондриальная функция лигазы III не требует XRCC1 как обязательного каркасного партнёра (Simsek et al., 2011). При длиннозаплаточном варианте BER обсуждаются дополнительные активности обработки вытесненной цепи, включая FEN1 и DNA2.
Каноническая нуклеотидная эксцизионная репарация, NER, характерная для ядра, в митохондриях не установлена в сопоставимом полном виде. Но отсюда не следует отсутствие любого контроля повреждений вне BER. Обработка разрывов и возможные рекомбинационные процессы исследуются в разных моделях; повреждённая мтДНК может деградировать, а целые органеллы — удаляться посредством митофагии. Поэтому «репарационный тупик» слишком жёстко описывает систему, в которой исправление отдельных оснований сочетается с заменой молекул и органелл.
Патогенные варианты ядерного POLG, в том числе A467T и W748S, способны нарушать поддержание мтДНК, но их последствия зависят от генотипа и клинического контекста. Это отличается от локального химического повреждения уже существующей молекулы. Сравнения «скорости мутаций мтДНК и ядерной ДНК» также требуют уточнять, измеряются ли наследуемые замены, соматические варианты, частота ошибок репликации или доля повреждённых оснований. Единого множителя для этих разных величин нет.
Число копий мтДНК различается между клеточными типами и меняется при развитии, метаболической адаптации и болезни. Энергетически активные ткани обычно поддерживают большой митохондриальный пул, а ооцит содержит особенно много копий. Однако фиксированные числа «на клетку» без метода измерения и состояния ткани создают ложную точность. Нуклеоид, митохондрия, клетка и тканевой образец — разные уровни организации: в каждом можно получить разную оценку состава геномов.
Гетероплазмия означает сосуществование вариантов мтДНК. Частный случай — смесь конкретного мутантного варианта и соответствующего дикого типа. Гомоплазмия означает преобладание одного варианта и не обязательно равнозначна здоровой последовательности. Для двухкомпонентного случая долю можно определить так:
Здесь выражено в процентах, а — безразмерная доля от 0 до 1. Количество сохранных копий содержит информацию, которую сам процент не отражает. Две клетки с одинаковым , но разным общим числом геномов и потребностью в АТФ могут иметь неодинаковый функциональный резерв.
При делении клетки случайное распределение копий и митохондрий меняет состав дочерних клеток; это репликативная сегрегация. В постмитотической ткани репликация и оборот мтДНК продолжаются, поэтому клональная экспансия возможна без деления самой клетки. Дрейф, отбор, локальная организация сети и скорость удаления молекул действуют совместно. Рост доли варианта в отдельном мышечном волокне не доказывает его общего преимущества во всех тканях (Chinnery and Turnbull, 1999).
Слияние с участием MFN1/2 и OPA1 и деление с участием DRP1 меняют организацию митохондриальной сети. Обмен компонентами и функциональная комплементация могут поддерживать дыхание при смешанном составе геномов, но не означают полного свободного смешивания всех нуклеоидов и продуктов трансляции. Разные варианты нарушают разные звенья системы; их эффект нельзя свести к одному универсальному правилу рецессивности.
Пороговый эффект возникает, когда сохранного функционального ресурса становится недостаточно для текущей потребности клетки. Его положение зависит от варианта, абсолютного количества сохранной мтДНК, трансляции, сборки комплексов, метаболических путей и тканевой нагрузки. Значения, полученные в клеточной линии или для конкретной семьи, не становятся диагностическими границами для всех делеций, тРНК или вариантов ATP6 (Rossignol et al., 2003).
Для объяснения нелинейного ответа можно использовать феноменологическую модель:
обозначает условный функциональный поток, — выбранное положение порога, — параметр формы кривой. Модель показывает сохранение резерва и последующее падение функции, но не является валидированным калькулятором АТФ для пациента. Она не учитывает все формы комплементации, клеточный метаболизм или возможность разных кривых для разных тканей. Выбор конкретного должен опираться на данные соответствующей системы, а не на красивую универсальную цифру.
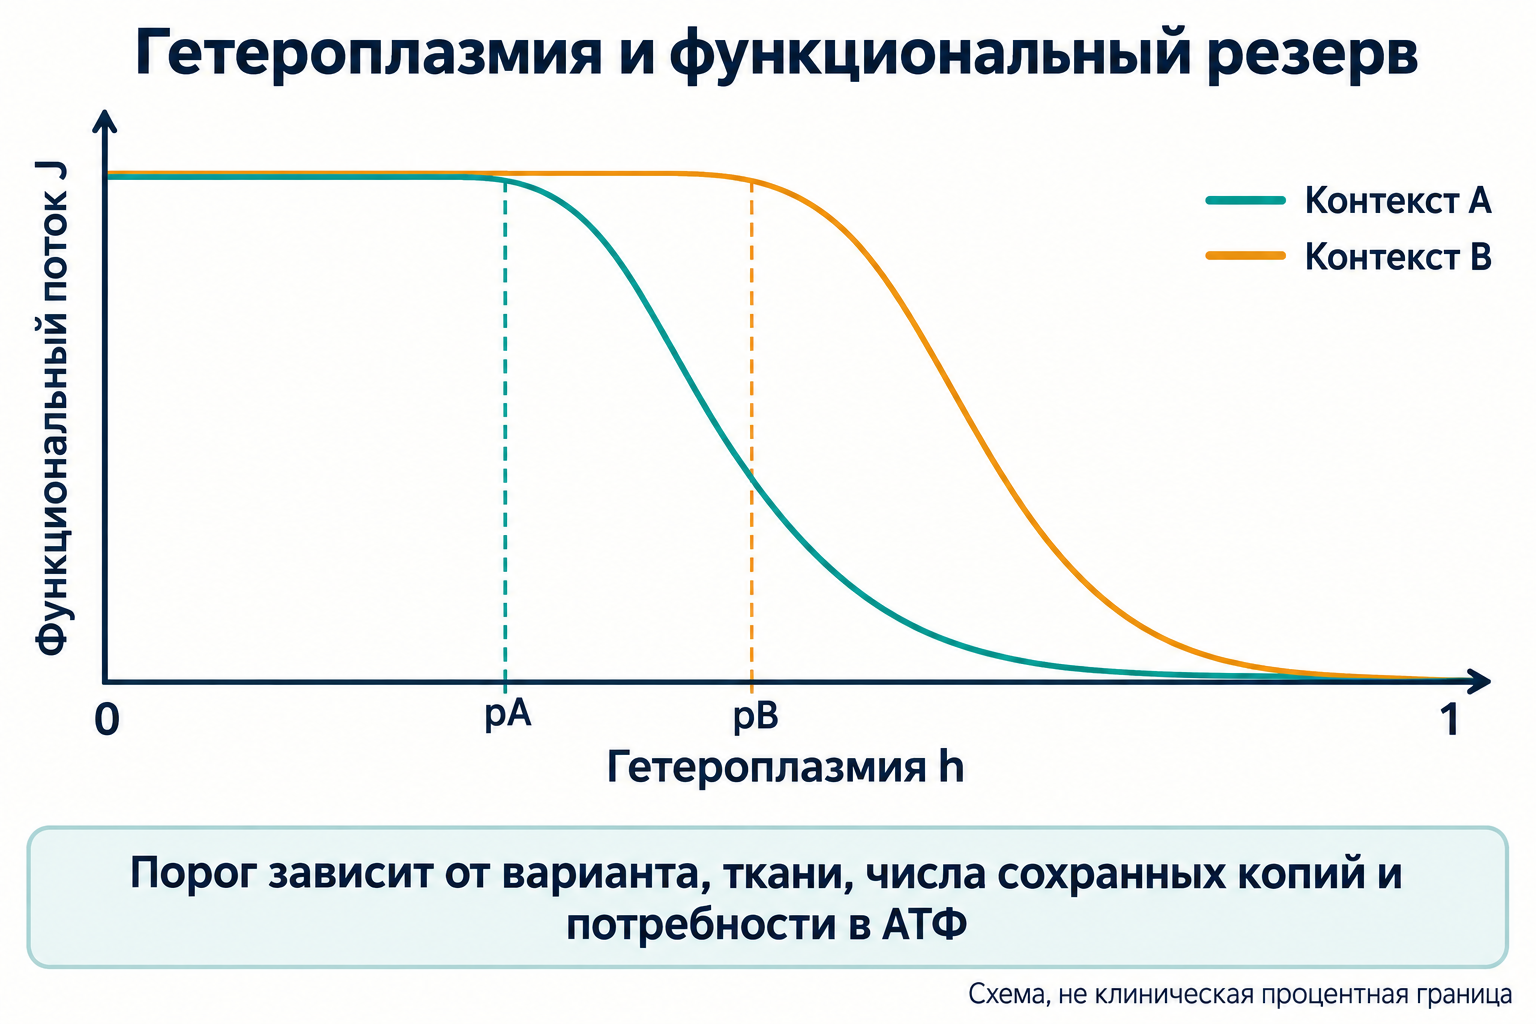
Рисунок 1. Одинаковая гетероплазмия может сочетаться с разным функциональным резервом. Порог зависит от варианта и ткани; схематические кривые не задают клинических процентных границ.
Нервная система, сетчатка, миокард, скелетные мышцы, почечные канальцы и эндокринные клетки могут быть чувствительны к нарушениям OXPHOS. Их уязвимость определяется одновременно потребностью в энергии, запасом мощности, способностью менять источник топлива и распределением поражённых клеток. Нельзя установить единый порядок органов, в котором каждый всегда «отказывает» при одном и том же проценте гетероплазмии.
В нейронах дефицит АТФ влияет на ионные градиенты, работу Na⁺/K⁺-ATPазы и обращение нейромедиаторов; в сердце — на сокращение и ионные насосы, поддерживающие электрическую стабильность. В канальцах почек энергозависимый транспорт обеспечивает реабсорбцию; в β-клетках поджелудочной железы связь метаболизма с секрецией инсулина делает митохондриальное состояние функционально значимым. Эти механизмы объясняют возможные проявления, но не устанавливают диагноз по одному симптому.
Тканевое среднее способно скрывать отдельные клоны с высокой мутантной нагрузкой. Красные рваные волокна, RRF, отражают аномальное накопление митохондрий в мышце, а COX-негативные участки — локальный дефицит активности комплекса IV. Такие признаки требуют морфологической и молекулярной интерпретации и не являются однозначным указанием на один конкретный вариант.
Вариант в MT-TL1 связан с широким спектром фенотипов, включая MELAS и диабет с тугоухостью, MIDD. в MT-TK часто обсуждается при MERRF. Разная гетероплазмия в тканях, возраст, ядерный фон и другие факторы способствуют клиническому разнообразию: название синдрома не задаёт одинаковую долю мутантных геномов во всех образцах (Wallace, 1999; Chinnery and Turnbull, 1999).
Для MT-ATP6 важно различать и . Первая замена связана с Leu156Arg, вторая — с Leu156Pro; это не одна и та же аминокислотная замена. Высокая нагрузка определённых вариантов может ассоциироваться с более тяжёлым спектром, включая NARP и митохондриально наследуемый синдром Лея, но учебные процентные диапазоны не заменяют клиническую оценку.
Синдром Кирнса–Сейра и хроническая прогрессирующая наружная офтальмоплегия могут быть связаны с одиночными крупными делециями. Делеция 4977 пар оснований — известный пример, а не обязательная молекулярная причина каждого случая. Кроме того, похожие нарушения поддержания мтДНК возникают при вариантах ядерных генов. Поэтому «митохондриальная болезнь» шире, чем болезнь одного митохондриально наследуемого варианта.
Свободнорадикальная теория старения Хармана связала накопление молекулярного повреждения с возрастными нарушениями; митохондриальная версия уделила особое внимание органелле как источнику окислителей и мишени их действия. Классический «порочный круг» можно записать как гипотезу: ROS повреждают мтДНК, мутации нарушают дыхательную цепь, а дефектная цепь усиливает образование ROS. Такая схема сформулировала проверяемые вопросы, но не доказывает, что каждый вариант мтДНК обязательно повышает продукцию окислителей (Harman, 1956; Wallace, 1999).
Для проверки важны независимые измерения последовательности генома, работы OXPHOS, продукции ROS, антиоксидантной защиты и клеточного оборота. Рост одного показателя окислительного повреждения не устанавливает направление всех причинных стрелок. И наоборот, снижение потребления кислорода способно уменьшить образование ROS в некоторых состояниях, несмотря на выраженное энергетическое нарушение. При таком контексте универсальная самоускоряющаяся петля оказывается слишком простой.
Работы Trifunovic и Kujoth с мышами, несущими дефект экзонуклеазной коррекции POLG, показали: искусственно повышенная мутационная нагрузка мтДНК может сопровождаться преждевременными возрастоподобными признаками. Модель демонстрировала нарушения тканей, потерю массы и другие изменения, а исследование Kujoth связало фенотип с усилением апоптоза. При этом ожидаемое обязательное усиление окислительного стресса не объясняло весь наблюдавшийся фенотип (Trifunovic et al., 2004; Kujoth et al., 2005).
Это сильный аргумент против необходимости ROS-петли как единственного механизма последствий мутаций. Однако животное с искусственным дефектом proofreading не равно человеку с обычным старением: отличаются спектр, скорость накопления и распределение вариантов. Эксперимент доказывает способность выраженного нарушения поддержания генома повреждать ткани, но не долю всех возрастных изменений человека, вызванную мтДНК.
Высокоточное секвенирование позволяет отделять истинные редкие варианты от технических ошибок. В работе Kennedy et al. многие возрастные замены в человеческой мтДНК имели характер транзиций, а не преобладающего увеличения трансверсий, ожидаемого для простой модели 8-оксогуанина. Такой спектр согласуется с существенной ролью ошибок репликации и иных процессов, включая изменения оснований, но сам по себе не позволяет приписать каждую замену одной химической причине (Kennedy et al., 2013).
Последствия мутационной нагрузки могут включать нарушение протеостаза, стрессовые ответы, апоптоз и снижение способности отдельных клеток поддерживать ткань. Влияние на стволовые и прогениторные популяции исследуется в моделях; его нельзя превращать в единственный универсальный механизм возрастного истощения всех стволовых клеток. Среднее значение мутантной нагрузки органа также может быть низким при наличии небольших COX-негативных клонов с высокой локальной нагрузкой.
Современная интерпретация поэтому рассматривает образование вариантов, их клональную экспансию, функцию и удаление клеток как взаимосвязанные, но различимые процессы. Редокс-повреждение остаётся частью биологии, а не исключается из неё целиком. При этом ни содержание одного аддукта, ни один вариант мтДНК не становятся универсальными «часами биологического возраста».
При нормальной компартментализации собственная мтДНК не эквивалентна воспалительному стимулу. Значение DAMP — молекулярного сигнала повреждения — она приобретает при доступе к соответствующим системам распознавания. Важны форма ДНК, степень окисления, её количество, место нахождения, способность клеток к захвату и скорость удаления. Поэтому одинаковая концентрация во внеклеточной жидкости не гарантирует одинаковой реакции разных клеток (West and Shadel, 2017).
Бактериальное происхождение митогенома помогает понять интерес к CpG-мотивам и TLR9. Но неверно считать каждую ядерную CpG-последовательность метилированной, а каждую молекулу мтДНК — абсолютно неметилированной: измерения митохондриальных модификаций имеют методические сложности. Кроме того, cGAS распознаёт доступную двуцепочечную ДНК без требования специфического CpG-мотива, поэтому CpG-аргумент не объясняет все иммунные пути.
Потеря мембранной целостности, изменения проницаемости и апоптотические механизмы могут создавать разные маршруты выхода ДНК. mPTP связана с проницаемостью для небольших молекул; её нельзя рисовать как готовый канал для целого митогенома. Набухание, нарушения мембран и высвобождение фрагментов рассматриваются в конкретных моделях. Работа McArthur et al. показала, что макропоры BAX/BAK при апоптозе позволяют грыжевидное выпячивание внутренней мембраны и выход мтДНК. Это экспериментально описанный маршрут, а не обязательная последовательность событий при любой митохондриальной дисфункции (McArthur et al., 2018).
Когда двуцепочечная ДНК становится доступна cGAS, фермент катализирует образование циклического динуклеотида из ATP и GTP:
Здесь обозначает пирофосфат; смешанные 2′–5′ и 3′–5′ связи отличают этот сигнальный продукт от обычного линейного олигонуклеотида. cGAMP активирует STING — мембранный адаптер эндоплазматического ретикулума. Последующие изменения локализации STING, включая перемещение к аппарату Гольджи, создают условия для сигнализации через TBK1 и фосфорилирование IRF3 (Sun et al., 2013; West et al., 2015).
IRF3 участвует в индукции интерферонов I типа и соответствующих генов ответа, ISG; отдельная ветвь связана с NF-κB. Выход мтДНК может таким образом соединять митохондриальный стресс и антивирусоподобную программу, в том числе в отсутствие вируса. Но состав ответа, включая IFN, CXCL10 и другие медиаторы, зависит от клеточного типа и состояния пути. Наличие цитозольной ДНК не означает неизбежный одинаковый выброс всех цитокинов.
TLR9 действует в эндосомальном компартменте. Внеклеточная ДНК должна попасть в соответствующее внутриклеточное пространство посредством захвата; прямую стрелку «цитозольная мтДНК → TLR9» без маршрута доставки нельзя считать корректной схемой. После распознавания возникают сигналы с участием MyD88, IRAK4/IRAK1, TRAF6 и IKK, которые регулируют IκB и NF-κB.
В подходящем клеточном контексте это может усиливать транскрипцию воспалительных медиаторов, включая TNF и IL-6. Однако химические свойства ДНК, её упаковка, работа эндосом и экспрессия рецептора меняют реакцию. Поэтому TLR9, cGAS и внеклеточная концентрация мтДНК обозначают разные уровни процесса, а не взаимозаменяемые диагностические маркеры.
Работа Shimada et al. связала окисленную мтДНК с активацией NLRP3 в изученной экспериментальной системе. Это важный механизм взаимодействия митохондриального стресса и воспаления, но формулировка «универсальный прямой лиганд LRR-домена» сильнее представленных данных. NLRP3 интегрирует несколько стрессовых событий; прайминг, ионные изменения, включая выход K⁺, и клеточное состояние имеют самостоятельное значение (Shimada et al., 2012).
После сборки комплекса с адаптером ASC активация каспазы-1 обеспечивает процессинг про-IL-1β и про-IL-18. Расщепление Gasdermin D, GSDMD, может приводить к образованию мембранных пор и пироптозу. Созревание цитокинов и гибель клетки связаны, но не должны изображаться как неизбежный исход любого обнаружения ox-мтДНК. TLR-зависимый прайминг возможен, однако для него не требуется единственный обязательный вход через TLR9.
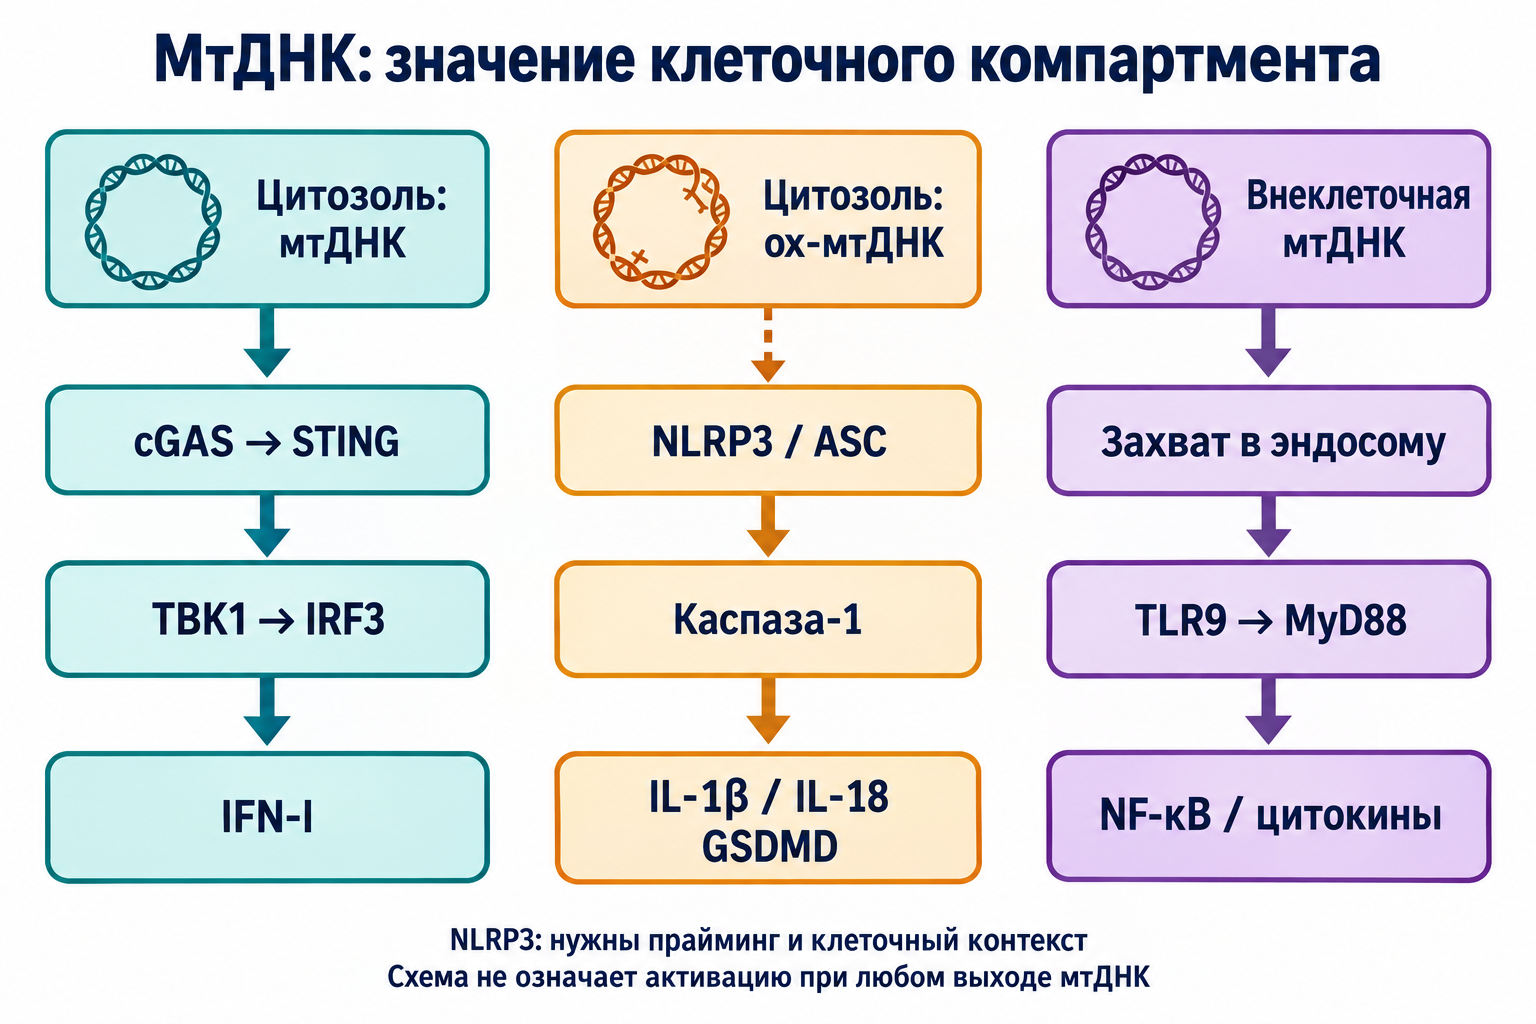
Рисунок 2. Цитозольная мтДНК, окисленная мтДНК и внеклеточная ДНК, захваченная в эндосому, связаны с разными путями. Пунктир обозначает зависимость связи с NLRP3 от контекста; схема не подтверждает универсальное прямое распознавание каждого фрагмента.
ccf-mtDNA может обнаруживаться в свободной форме и в составе внеклеточных структур. Её концентрация отражает сочетание высвобождения, переносчиков, деградации и клиренса. При измерении плазмы существенно влияют подготовка образца, остаточные клетки и тромбоциты, способ выделения, выбранный участок амплификации и нормализация qPCR или ddPCR. Поэтому число копий нельзя интерпретировать независимо от аналитического протокола.
Ассоциации ccf-mtDNA с воспалением, сердечно-сосудистой патологией и нейродегенеративными состояниями исследуются, но величина и даже направление различий могут зависеть от заболевания и образца. Плазма и спинномозговая жидкость — разные среды; повышение в одной не позволяет предсказать повышение в другой. Корреляция с тяжестью состояния также не доказывает, что именно ДНК вызывает все клинические проявления.
Для темы инфламмэйджинга важен длительный дисбаланс повреждения, удаления и иммунной регуляции. Однако исследовательская связь не делает ccf-mtDNA самостоятельным тестом «скорости старения», диагнозом болезни Альцгеймера или показанием к блокатору STING. Уровень сигнала и подтверждённая работа соответствующего пути должны оцениваться отдельно.
Присоединение липофильного катиона трифенилфосфония, , позволяет использовать электрический потенциал мембран для обогащения молекулы в митохондриях. Распределение заряда и липофильность облегчают прохождение через липидный бислой. Этот принцип отличается от утверждения, будто витамин C, витамин E или ресвератрол вообще не способны достигать митохондрий: их распределение и свойства другие, но абсолютная непроницаемость не является обоснованным объяснением ограничений клинического эффекта (Smith et al., 1999; Skulachev, 2007).
При соглашении для идеального моновалентного катиона равновесие описывает выражение:
Отрицательный потенциал матрикса даёт положительный показатель накопления. При температуре около 37 °C изменение порядка 60 мВ соответствует примерно десятикратному изменению идеального равновесного отношения. Это объясняет обогащение, но реальная экспозиция зависит также от связывания, мембранной доступности, кинетики и метаболизма. Для последовательного прохождения двух мембран потенциалы могут входить в модель совместно; нельзя подставлять отрицательные значения в формулу с противоположным знаком и одновременно обещать увеличение концентрации.
MitoQ включает убихиноновую часть и линкер с TPP; восстановленная форма может участвовать в защите липидов. SkQ1 использует пластохиноновую часть. Антиоксидантное и прооксидантное действие, мембранные эффекты и переносимость зависят от концентрации и системы. Сильная деполяризация способна уменьшить накопление катиона именно в наиболее повреждённой органелле. Поэтому направленность доставки не равна абсолютной селективности, отсутствию токсичности или ремонту уже закреплённой мутации.
Численный эффект на сосудистую функцию, приведённый в исходном тексте без соответствующей клинической работы в библиографии, здесь не используется как доказательство защиты мтДНК. Для такого вывода нужны отдельно подтверждённые исходы и измерение генома. Свойства убихинона и клинические ограничения обсуждаются также в статье о коэнзиме Q10 и полифенолах; это контекст дыхательной цепи, а не подтверждение коррекции гетероплазмии MitoQ.
В поляризованной митохондрии импорт PINK1 и его обработка, включая участие PARL, способствуют низкому уровню белка на внешней мембране. При нарушении импорта PINK1 накапливается на её поверхности и фосфорилирует убиквитин по Ser65, создавая условия для привлечения и активации Parkin. Далее убиквитинирование мембранных мишеней и рекрутирование рецепторов аутофагии, включая OPTN и NDP52, связывают повреждённый участок с системой LC3 и аутофагосомой; TBK1 участвует в регуляции этого процесса (Pickrell and Youle, 2015; Lazarou et al., 2015).
Доставка в лизосому позволяет удалить органеллу и её содержимое, но PINK1 не является сенсором определённого процента мутантной мтДНК. Для его активации не требуется универсальное значение гетероплазмии или обязательное полное обнуление потенциала. Более того, митофагия не ограничивается PINK1/Parkin: рецепторы BNIP3, NIX и FUNDC1 обеспечивают альтернативные связи с аутофагической системой, например при гипоксической адаптации или развитии. Значение каждого маршрута зависит от ткани и воздействия.
Уролитин A изучался как воздействие, связанное с митохондриальным качеством и митофагией. Andreux et al. описали переносимость и молекулярные признаки ответа у людей; Singh et al. исследовали мышечную функцию и биомаркеры у людей среднего возраста. Эти работы не равнозначны доказанному выборочному удалению мутантных геномов, устойчивому снижению гетероплазмии у пациентов или лечению MELAS. В частности, изменение экспрессии генов или метаболитов не является непосредственным измерением потока митофагии в каждой ткани (Andreux et al., 2019; Singh et al., 2022).
Спермидин исследуется в связи с аутофагией и продолжительностью жизни в модельных системах; работа Eisenberg et al. поддерживает этот исследовательский контекст. Регуляция ацетилирования и обсуждаемый механизм через EP300 требуют различать работы и условия, а не приписывать одной ранней публикации весь последующий механизм. Активация общего аутофагического ответа также не гарантирует генотипическую селекцию мтДНК. У человека доказательства «омоложения генома» или универсальной дозы для такой цели из этих механизмов не следуют.
Энергетическое состояние клетки влияет на AMPK; активация с участием фосфорилирования Thr172 связывает энергетический дефицит с адаптационными программами. PGC-1α выступает транскрипционным коактиватором, а NAD⁺-зависимая деацетилаза SIRT1 связывает его регуляцию с метаболическим состоянием. Фосфорилирование и ацетилирование меняют активность сети, но простая линейная цепочка не описывает все обратные связи и тканевую специфичность (Cantó and Auwerx, 2009).
Через ядерные respiratory factors NRF1 и NRF2/GABP регулируются гены митохондриальной функции. Здесь NRF2 означает GABP, а не антиоксидантный фактор NFE2L2, который часто также называют Nrf2. TFAM после импорта участвует в упаковке и инициации транскрипции вместе с POLRMT и TFB2M; он не является ферментом, самостоятельно удваивающим геном. Репликационный аппарат должен координироваться с мембранной биогенезой, импортом белков и сборкой комплексов (Scarpulla, 2011).
Увеличение числа геномов может повысить абсолютное число сохранных копий, даже если их относительная доля не меняется. Но биогенез способен увеличить и мутантный пул: преимущественное размножение дикого типа требует отдельного обоснования. Сведения о витамине B3 и NAD-зависимом метаболизме полезны для понимания коферментного контекста, однако наличие NAD⁺-зависимого фермента не доказывает, что любой его предшественник снижает гетероплазмию или восстанавливает последовательность ДНК.
Аэробная и силовая нагрузка могут менять митохондриальный биогенез, качество органелл и функциональную ёмкость мышц. Адаптация включает энергетические сигналы, протеостаз и клеточный оборот, поэтому улучшение выносливости не обязательно означает снижение доли конкретного мутантного варианта. Рост функционального резерва и смена генотипического состава следует измерять раздельно.
Участие мышечных клеток-предшественников в ремоделировании также не означает, что они всегда содержат исключительно «чистую» мтДНК или неизменно замещают мутантные копии. Для человека с митохондриальной болезнью программа нагрузки определяется состоянием и клинической оценкой; HIIT не следует из молекулярной схемы как универсальная терапия. Прямую коррекцию гетероплазмии тренировкой нельзя обещать без данных о варианте, ткани и долговременном ответе.
Митохондриально направленные нуклеазы доставляют белковый комплекс с последовательность-специфическим распознаванием ДНК. В mitoZFN используются цинковые пальцы, в mitoTALEN — домены TALE; каталитические домены FokI обеспечивают разрез при подходящей конфигурации. Выборочное повреждение мутантных молекул может привести к их деградации и обогащению оставшегося пула сохранным вариантом. Это сдвиг состава популяции, а не обязательное исправление каждой вырезанной молекулы.
В работе Gammage et al. применялись именно mtZFN, а не TALEN: последовательные воздействия на клеточную модель изменяли гетероплазмию примерно с 80% до 7%. Исследование также обсуждало нежелательное истощение общего числа копий и контроль дозы экспрессии. Этот конкретный эксперимент не доказывает такую же коррекцию MELAS или MERRF в организме пациента (Gammage et al., 2016).
Принцип требует сохранного пула для восстановления числа копий и достаточной селективности. Если вариант гомоплазмический, простое уничтожение несущих его молекул не создаёт новую нормальную последовательность. Доставка в разные органы, нежелательное расщепление, иммунные реакции и долговременная безопасность ограничивают перенос клеточного результата в клиническое лечение.
DdCBE — DddA-derived cytosine base editors — используют разделённые части бактериальной цитидиндезаминазы, адресованные к ДНК с помощью белкового распознавания; система включает ингибитор урацил-ДНК-гликозилазы. Работа Mok et al. показала возможность CRISPR-независимого редактирования митохондриальной ДНК без внесения двуцепочечного разрыва. Основной тип изменения исходной системы — , а не произвольная замена любого основания (Mok et al., 2020).
Белковая доставка обходит проблему доставки направляющей РНК, но не делает редактирование универсальным и безопасным автоматически. Значимы последовательностный контекст, побочные изменения соседних оснований, редактирование нежелательных мишеней и доставка. В частности, из возможности нельзя вывести прямое исправление обратно в A данной системой. Эти технологии раскрывают исследовательские возможности; заявление о готовом стандартном способе «ремонта митогенома» требует отдельных клинических данных.
Механистический маркер помогает выбрать вопрос и метод измерения, но не автоматически назначить препарат. В таблице сохранены ключевые звенья исходного материала; клинические обещания заменены границами интерпретации.
| Звено / показатель | Основной процесс | Что может измеряться | Ограничение вывода |
|---|---|---|---|
| 8-oxoG / 8-OHdG | Окисление гуанина; возможность ошибочного спаривания | Аддукт в выделенной ДНК или продукт в биожидкости | Не равен фиксированной мутации и не локализует её в митохондрии автоматически |
| и 4-HNE-аддукты | Вторичные продукты липопероксидации | Химические аддукты, модификации белков и нуклеиновых кислот | Не специфичны одному органу или болезни; требуют контроля образца |
| Делеция 4977 п.н. | Утрата генов и тРНК | Доля делеции и распределение по ткани | Нет единого клинического порога; не объясняет все случаи KSS/CPEO |
| Вариант тРНК MT-TL1 | Вариант и его гетероплазмия в выбранном образце | Кровь может не отражать поражённую ткань; MELAS и MIDD не сводятся к одному проценту | |
| Вариант MT-ATP6, Leu156Arg | Молекулярный вариант и тканевая нагрузка | Его нельзя объединять с , Leu156Pro, без различения | |
| Дефект коррекции POLG | Ошибки поддержания генома | Ядерный генотип, истощение или множественные изменения мтДНК | Модель мыши-мутатора не является тестом обычного старения человека |
| Цитозольная мтДНК | Доступ к cGAS–STING | Локализация ДНК и активация сигнальных звеньев | Концентрация в плазме не доказывает работу цитозольного пути |
| ox-мтДНК / NLRP3 | Контекст-зависимый воспалительный ответ | Сборка инфламмасомы, каспаза-1, зрелые цитокины | Нужны прайминг и функциональные данные; не универсальный прямой лиганд |
| ccf-mtDNA | Высвобождение, транспорт и удаление ДНК | Копии в биожидкости по стандартизированному протоколу | Не самостоятельный диагноз, мера возраста или показание к блокатору рецептора |
Диагностика начинается с клинического фенотипа, семейного анамнеза и распределения поражённых органов. Материнское наследование может указывать на мтДНК, но ядерные причины имеют другие схемы наследования, а отсутствие семейной истории не исключает заболевание. Выбор методов должен отвечать конкретной гипотезе, а не повторять универсальную панель «митохондриального возраста».
Лактат и пируват зависят от условий забора, обработки образца, нагрузки и других состояний. Их соотношение не имеет одного диагностического порога, действующего при всех концентрациях и клинических обстоятельствах. CK, AST/ALT, миоглобин и органические кислоты помогают оценивать определённые процессы, но неспецифичны для варианта мтДНК. Один повышенный показатель не подтверждает диагноз, а нормальный не исключает все митохондриальные болезни.
Генетическое исследование может включать секвенирование митогенома, поиск делеций и дупликаций и анализ ядерных генов поддержания, например POLG, TWNK, DGUOK и других по показаниям. Для редкой гетероплазмии важны валидированный предел обнаружения, ошибки секвенирования и отличение мтДНК от ядерных вставок NUMT. Глубина прочтения сама по себе не гарантирует точность: нужны корректная аналитика и контроль качества. ddPCR может уточнять долю конкретного варианта или число копий, но результат зависит от мишени и нормализации.
Выбор ткани принципиален. При некоторых вариантах исследование крови может недооценивать нагрузку в поражённом органе; отрицательный анализ одной среды не исключает тканевой мозаицизм. Образец мочевого эпителия или мышцы выбирается по клинической задаче, а не как обязательная ступень для каждого человека. 8-OHdG в моче, hsCRP, IL-6 и ccf-mtDNA не заменяют молекулярную диагностику: они не устанавливают причину всех симптомов и не указывают напрямую на конкретную мутацию.
По показаниям мышечная биопсия и окраски RRF, COX/SDH могут дополнять картину. Респирометрия исследует работу дыхания при определённых субстратах и состоянии образца; обозначения State 3/State 4 и коэффициент дыхательного контроля, RCR, имеют смысл в заданном экспериментальном протоколе. Морфология и функция не заменяют генетическое объяснение, а инвазивные исследования не становятся рутинным профилактическим скринингом только потому, что мтДНК участвует в старении.
Устойчивость митохондриальной системы зависит от поддержания последовательности, достаточного числа функциональных копий, организации сети и своевременного удаления повреждённых компонентов. Эти процессы связаны, но имеют разные измеряемые результаты. Антиоксидантное действие не равнозначно репарации закреплённого варианта; митофагия не гарантирует селекции генотипа; биогенез не обязательно снижает относительную гетероплазмию; улучшение функции не доказывает изменение последовательности.
Исследования старения показали ограничения универсального ROS-порочного круга, а иммунная биология — значение выхода ДНК за пределы обычного компартмента. При этом ни одна из этих линий не объясняет единолично все возрастные или воспалительные болезни. Научно обоснованный вывод требует связывать молекулярный результат с конкретной моделью, тканью и клинической задачей, сохраняя различие между ассоциацией, механизмом и подтверждённым лечебным исходом.
Это нарративный научный разбор, подготовленный на основе предоставленного текста и его библиографии. Он не является систематическим обзором с заранее зарегистрированным поиском, не присваивает формальный GRADE и не заявляет независимую клиническую экспертизу. При редакционной работе 8 октября 2026 года точечно проверены неоднозначные записи TFAM, mtZFN, Kennedy и исследования уролитина A, а также различие митохондриальной LIG3 и XRCC1; общий поиск новой литературы и массовая проверка всех ссылок не проводились. Уровни доказательств описаны словами по типу модели и исходам, а не подменены лечебными рекомендациями.
Единой границы нет. Значимы вариант, ткань, абсолютное число сохранных копий, энергетическая потребность и распределение поражённых клеток.
Эти показатели исследуют повреждение или циркулирующую ДНК, но сами по себе не определяют скорость старения, источник всех повреждений или конкретную митохондриальную болезнь.
Изменение митохондриальных маркеров и функции не равно доказанному выборочному удалению мутантных геномов. Для такого вывода нужны отдельные измерения варианта и ткани.
Нет. Нуклеазы меняют состав пула, а DdCBE имеет ограниченную химическую специфичность; доставка, сохранение числа копий и нежелательные изменения требуют отдельной оценки.