
Astaxantina en membranas: peroxidación, farmacocinética y límites clínicos
Química y estereoisomería, orientación en bicapas modelo, cinética LPO, mitocondrias, Nrf2/NF-κB y lectura crítica de pequeños estudios humanos.
Química y estereoisomería, orientación en bicapas modelo, cinética LPO, mitocondrias, Nrf2/NF-κB y lectura crítica de pequeños estudios humanos.
La astaxantina permite examinar cómo una hipótesis molecular plausible se convierte en una promesa terapéutica excesiva. Sus grupos terminales hidroxilo y cetona interactúan con la región polar de la membrana, el polieno conjugado se distribuye entre las cadenas acilo y distintos sistemas modelo detectan cambios en la oxidación lipídica. Sin embargo, la orientación en una bicapa artificial depende de la composición y la concentración; cambiar un biomarcador humano no equivale a reducir el riesgo de enfermedad. Por ello se distinguen a continuación la química, la biofísica de membranas, la cinética en cadena, las vías celulares y los experimentos humanos según su nivel de evidencia.
La astaxantina es una xantofila C₄₀ de fórmula C₄₀H₅₂O₄ y masa molar aproximada de 596,8 g/mol. Su esqueleto consta de una cadena poliénica y dos anillos de β-ionona, cada uno con OH en C3 o C3′ y un grupo cetona en C4 o C4′. El nombre sistemático de un enantiómero natural concreto es (3S,3′S)-3,3′-dihidroxi-β,β-caroteno-4,4′-diona; «astaxantina» sin precisión estereoquímica incluye otras configuraciones. Los «13 dobles enlaces conjugados» citados habitualmente son 11 enlaces C=C y dos C=O conjugados, no 13 C=C. La deslocalización de electrones π determina la absorción visible y la posibilidad de transferir energía de excitación o reaccionar con radicales. El máximo espectral depende del disolvente, la agregación, la composición cis/trans y la matriz; no existe un valor para cualquier membrana. Las energías HOMO/LUMO calculadas para una molécula aislada no ordenan por sí solas las velocidades de protección celular: hacen falta el oxidante concreto, las constantes de velocidad, los competidores y la concentración local (Woodall y cols., 1997).
C3 y C3′ son centros quirales. En el esqueleto simétrico se distinguen las formas especulares (3S,3′S) y (3R,3′R), además de la configuración meso (3R,3′S), equivalente a (3S,3′R). En Haematococcus pluvialis suele predominar (3S,3′S); en Xanthophyllomyces dendrorhous (Phaffia rhodozyma), la configuración opuesta. La síntesis química mediante un proceso no selectivo apropiado produce tres formas estereoquímicas. Sus proporciones dependen de la cepa, la producción y el análisis del lote: una tabla fija de porcentajes no puede aplicarse a todos los productos naturales y sintéticos. En materia prima algal la molécula suele estar esterificada con ácidos grasos, mientras que un preparado sintético puede contener la forma libre. Esto modifica extracción e hidrólisis, pero comparar biodisponibilidad exige la misma matriz de formulación y dosis, no la etiqueta «natural» (Odeberg y cols., 2003).
La biosíntesis incluye la hidroxilación de los anillos de β-ionona por β-caroteno hidroxilasa y su cetolación por β-caroteno cetolasa; el orden y las xantofilas intermedias dependen de las enzimas del organismo. Esquemáticamente: β-caroteno → intermediarios hidroxi y/o ceto → astaxantina. Este mapa explica OH y C=O, pero no demuestra que un enantiómero se una mejor que otro a un receptor del enterocito: se necesitan estudios comparativos independientes.
El polieno admite isómeros all-E y Z, incluidos 9-Z y 13-Z. La luz, el calor, el oxígeno y la matriz pueden modificar la composición isomérica o provocar degradación oxidativa. Un enlace Z cambia la proyección molecular, el empaquetamiento cristalino y la disolución en lípidos, pero no implica un «acortamiento hasta 22–25 Å» universal ni pérdida automática de actividad antioxidante. Isomería y estereoquímica son independientes: (3S,3′S) no indica si la cadena es all-E. Al comparar estudios también deben distinguirse analíticamente ésteres, molécula libre y productos de oxidación. La acumulación tisular depende de composición inicial, transformaciones intestinales, transporte lipoproteico y eliminación, no de una sola conformación dibujada.
La bicapa fosfolipídica contiene interfaces acuosas con cabezas hidratadas y un núcleo menos polar de cadenas acilo. La separación entre interfaces, el espesor hidrófobo, la hidratación y el orden lateral varían con los lípidos, la insaturación, el colesterol, la temperatura y la fase. Por ello es metodológicamente incorrecto comparar una longitud calculada de la molécula extendida con un único «espesor de membrana viva preciso a décimas de Å». DPPC en fase gel, DOPC en fase fluida y una membrana mitocondrial con cardiolipina no comparten geometría. Profundidad e inclinación requieren un modelo y método concretos, como parámetros de marcadores de espín, espectroscopia, dispersión o dinámica molecular bajo condiciones definidas (Goto y cols., 2001; McNulty y cols., 2007).
Los dos grupos terminales oxigenados hacen anfipática a la astaxantina: los extremos pueden interactuar con las cabezas hidratadas y el polieno con la zona acilo. En algunas bicapas artificiales es energéticamente posible que los extremos miren hacia superficies opuestas, lo que ayuda a explicar cambios en el orden lipídico local y la accesibilidad de radicales a distintas profundidades (Goto y cols., 2001; McNulty y cols., 2007). Es una hipótesis modelo sobre una distribución de orientaciones, no una postura fija demostrada de cada molécula en toda membrana celular. El ángulo no es una constante universal; «entrecruzamiento de membrana» designa aquí interacciones no covalentes, no enlaces químicos entre fosfolípidos.
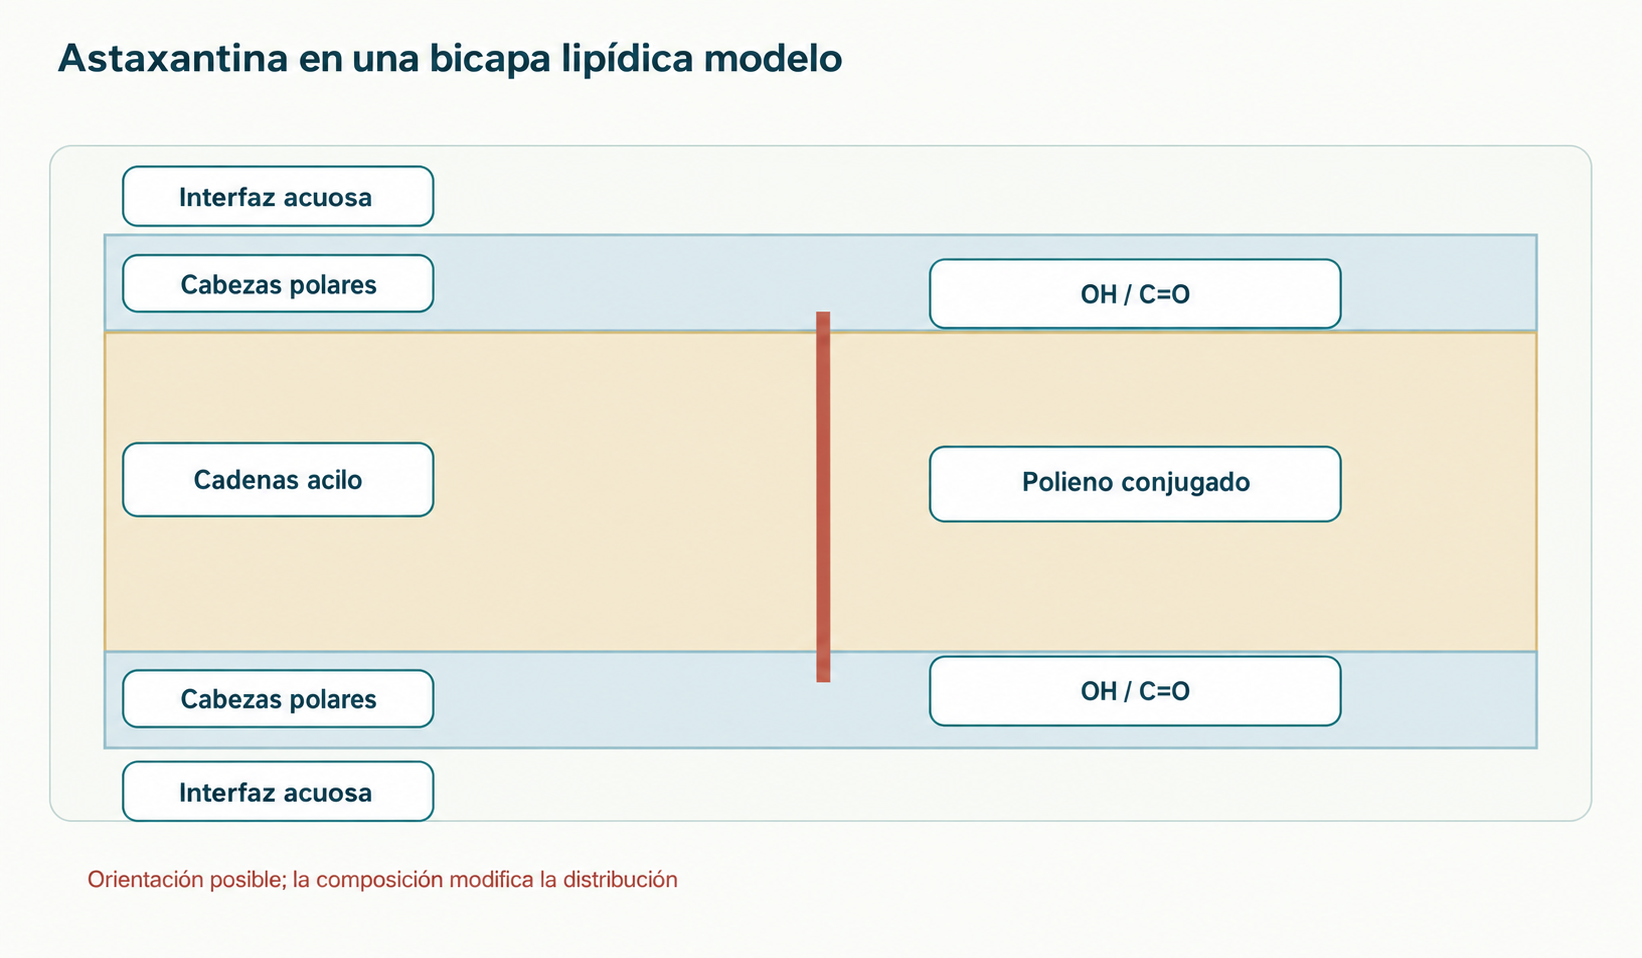
β-Caroteno y licopeno carecen de esos extremos polares y se distribuyen de otra manera en la bicapa; ello no implica posición horizontal obligatoria, desorganización de cualquier membrana ni toxicidad a toda concentración. Luteína y zeaxantina también poseen extremos polares y pueden adoptar orientaciones que atraviesan el espesor de la bicapa. Los grupos cetona amplían las interacciones de la astaxantina, pero no es el único carotenoide con posible orientación entre monocapas. La comparación exige igual composición de membrana, fracción molar, temperatura y propiedad medida; sin ello, una tabla de «superioridad absoluta» es inválida. Las diferencias fotoquímicas y de química radicalaria no equivalen automáticamente a eficacia clínica distinta.
Añadir un carotenoide a una membrana modelo puede modificar parámetros de orden, microviscosidad, permeabilidad y perfil térmico de Lβ → Lα. La dirección depende de fase gel o líquido-cristalina, proporción de astaxantina, colesterol y sonda utilizada. Ensanchar o atenuar un pico calorimétrico indica cambio de cooperatividad de la transición en esa muestra, no prevención universal del daño membranal por fiebre. Las observaciones en liposomas y eritrocitos son útiles mecanísticamente, pero no establecen que la administración oral evite hemólisis osmótica, fuga vascular o pérdida de gradientes iónicos humanos (McNulty y cols., 2007). La pregunta práctica es si absorción y transporte logran una fracción molar comparable en la membrana pertinente; no está establecida para la mayoría de escenarios clínicos propuestos.
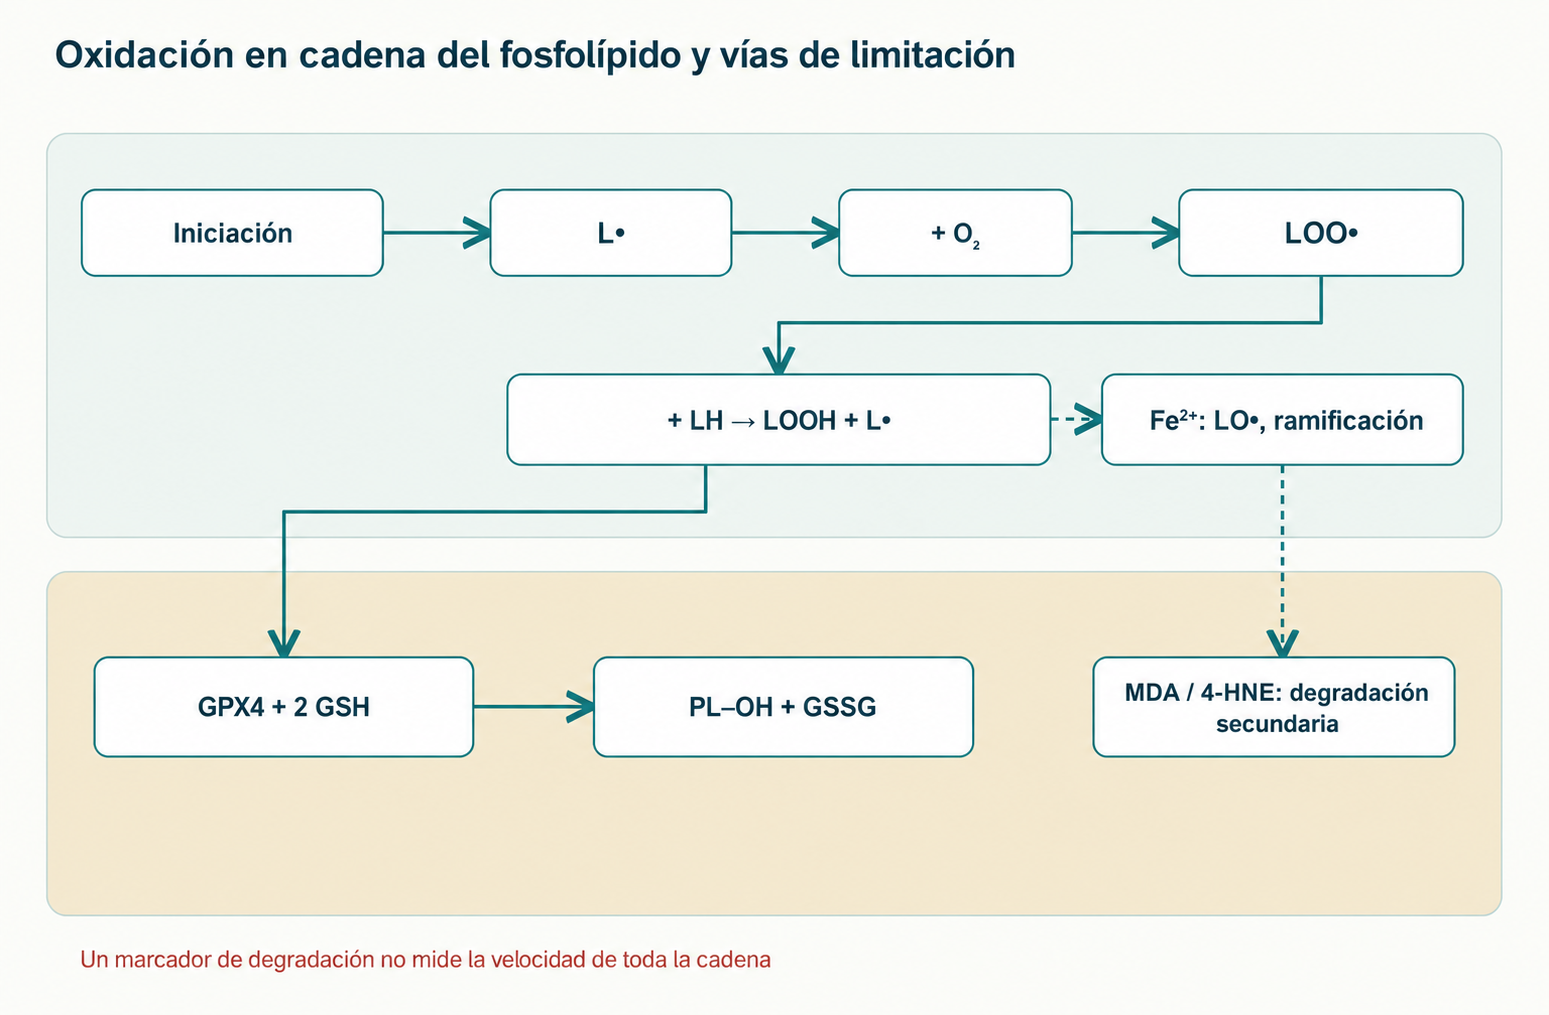
El hidrógeno metilénico bis-alílico de un residuo acilo poliinsaturado de fosfolípido es vulnerable a la abstracción radicalaria. Designemos ese residuo LH. La reacción inicial puede escribirse LH + X• → L• + XH; después L• + O₂ → LOO• y LOO• + L′H → LOOH + L′•. El último paso regenera un radical y permite propagar la cadena. Las constantes varían con sustrato, oxígeno, fase y temperatura: una cifra no representa la velocidad en toda membrana. LOOH + Fe²⁺ → LO• + OH⁻ + Fe³⁺, si el metal está accesible, forma un radical alcoxilo y favorece la ramificación. La eliminación enzimática del hidroperóxido compite con esta vía: GPX4 cataliza PL–OOH + 2 GSH → PL–OH + GSSG + H₂O si están disponibles la selenoproteína y el glutatión reducido.
La terminación es una reacción tras la cual la cadena no sigue generando L•, por ejemplo LOO• + LOO• → productos estables + O₂, o una captura suficientemente rápida por un donante que interrumpe la cadena. Malondialdehído (MDA), 4-hidroxi-2-nonenal (4-HNE) y otros carbonilos reactivos surgen principalmente del deterioro secundario de residuos poliinsaturados oxidados: son productos de daño, no la propia terminación. Su concentración depende de formación, metabolismo posterior, unión a proteínas y método analítico. Aumentar un marcador no mide automáticamente el flujo de toda la cadena. En este contexto resulta útil el artículo sobre polifenoles alimentarios y límites de interpretación de marcadores antioxidantes: polifenoles de los alimentos y seguridad.
¹O₂ aparece por fotosensibilización y otras reacciones; puede oxidar un enlace insaturado sin un radical de carbono inicial. El polieno carotenoide acepta energía: ¹O₂ + AST(S₀) → ³O₂ + ³AST*; el retorno de ³AST* al estado basal disipa energía. La desactivación física no exige consumo estequiométrico del carotenoide; la oxidación química sí consume astaxantina. Ambas vías compiten y sus proporciones dependen de disolvente, oxígeno, agregación y moléculas vecinas. Las constantes relativas en disolución o liposomas no significan eficacia clínica «550/800/6000 veces mayor» al compararla con ascorbato, tocoferol o CoQ10 sin compartimento común y ensayo idéntico (Woodall y cols., 1997).
AST y LOO• pueden reaccionar por transferencia de hidrógeno, transferencia electrónica y adición al polieno; productos y contribución relativa dependen del medio. La simplificación LOO• + AST–H → LOOH + AST• supone que AST• es menos proclive a continuar la cadena, pero debe demostrarse cinéticamente. La deslocalización resonante no implica inercia química absoluta. Reducir AST oxidada mediante un reductor en la interfaz acuosa, como ascorbato, es físicamente posible; afirmar un «relevo electrónico» obligatorio y demostrado AST → ascorbato → glutatión en células humanas sería excesivo. Requiere velocidades de cada etapa, coincidencia de reactivos en un compartimento y balance demostrado de formas oxidadas/reducidas, no solo una topología atractiva. Peroxinitrito y radicales peroxilo lipídicos son reactivos distintos; el término «captador» no iguala su eficiencia.
Los grandes ensayos de β-caroteno en fumadores y personas expuestas al asbesto no permiten atribuir mecánicamente el mismo riesgo a astaxantina; tampoco su estructura diferente garantiza seguridad absoluta a cualquier dosis y pO₂. Autooxidación del polieno, epóxidos, apocarotenoides y aductos radicalarios dependen de oxígeno, luz, matriz y concentración. Puede haber diferencias experimentales entre carotenoides, pero no puede inferirse «adición de O₂ termodinámicamente prohibida» de un LUMO menor sin medir reacción y productos (Woodall y cols., 1997). Incluso inhibir oxidación en un modelo no excluye efectos adversos en embarazo, fumadores o uso prolongado. El riesgo clínico corresponde a una forma, población y pauta concretas, igual que al discutir coenzima Q10 en combinaciones alimentarias.
La cardiolipina es un fosfolípido con cuatro cadenas acilo, enriquecido en la membrana mitocondrial interna y participante en organización de crestas, proteínas respiratorias e interacción con citocromo c. Su composición acilo es específica del tejido; la tetralinoleoil-cardiolipina es importante en corazón, pero sus porcentajes no se extrapolan al cerebro ni a toda especie animal. Su peroxidación puede modificar unión del citocromo c y función de complejos. Sin embargo, liberar citocromo c al citosol también exige permeabilidad de la membrana externa, generalmente regulada por BAX/BAK u otros mecanismos contextuales. mPTP no se reduce a una pareja ANT–VDAC obligatoria; composición y regulación de la transición de permeabilidad siguen investigándose.
En mitocondrias cardíacas aisladas se estudió astaxantina mediante oxidación, hinchamiento dependiente de calcio y parámetros bioenergéticos (Belova y cols., 2019; Krestinina y cols., 2023). Añadirla directamente a una suspensión no equivale a su concentración en la membrana interna tras ingerir una cápsula. Menor daño en un modelo no demuestra «bloqueo completo» de peroxidación de cardiolipina, ΔΨm fijo ni prevención del infarto. La proporción de oxígeno convertido en ERO varía con estado respiratorio y sustratos; «0,2–2%» no es una constante universal. Para conectar esta química membranal con otra señalización mitocondrial, véase melatonina y mitocondrias, con distinta entrega y resultados.
En estado basal KEAP1 favorece unión de Nrf2 al complejo CUL3–RBX1, ubiquitinación y degradación proteasómica. Al alterarse ese control, Nrf2 recién sintetizado se acumula, entra al núcleo, forma complejos con pequeñas Maf y se une a ARE; pueden contribuir otras vías reguladoras. Tras astaxantina se describieron cambios de Nrf2 y genes subordinados en modelos celulares y animales (Fakhri y cols., 2022). Pero la unión covalente directa AST–Cys151/Cys273/Cys288 de KEAP1 y la separación selectiva KEAP1–CUL3 no están establecidas sin experimentos sobre la diana: no debe modelarse automáticamente la astaxantina como electrófilo clásico reactivo con cisteína.
Las salidas posibles del eje difieren. HMOX1 degrada hemo formando biliverdina y CO y liberando hierro; ferritina es una respuesta celular aparte, no producto de esa reacción. NQO1 reduce quinonas por dos electrones mediante NAD(P)H; GCLC/GCLM sostienen el primer paso ATP-dependiente de síntesis de GSH desde glutamato y cisteína, y glutatión sintetasa añade glicina. GPX4 reduce hidroperóxidos fosfolipídicos consumiendo GSH, pero no es la única enzima capaz de neutralizar todos los peróxidos membranales. SOD2 de matriz dismuta O₂•⁻ a H₂O₂, que después deben eliminar las peroxidasas. Cambiar un transcrito es solo un nivel: inferir función exige proteína, actividad, sustratos y daño lipídico en el compartimento pertinente.
La señalización canónica TNF, IL-1 o TLR activa IKK; fosforilar IκBα en Ser32/Ser36 promueve ubiquitinación y degradación, y RelA/p50 liberado entra al núcleo. Modelos con astaxantina comunicaron menor actividad nuclear NF-κB y cambios de TNF, IL-1β, IL-6, NOS2/iNOS y PTGS2/COX-2 (Fakhri y cols., 2022). Esto es compatible con influencias indirectas sobre oxidación, receptores o estímulo inflamatorio. No identifica inequívocamente a AST como inhibidor alostérico directo de IKKβ. Cambios simultáneos de Nrf2 y NF-κB tampoco prueban supresión causal de un eje por otro. Cultivo celular a concentración y exposición definidas es un modelo mecanístico, no promesa antiinflamatoria clínica.
Los mecanismos compartidos de oxidación en LDL, piel y miocitos no permiten agrupar pequeños ensayos heterogéneos como prevención demostrada de aterosclerosis, fotoenvejecimiento, ojo seco y agotamiento deportivo. Importan aleatorización, control de matriz, condición inicial, integridad de datos y desenlace predefinido. Se conservan los trabajos de la base original, vinculando cada observación a lo medido.
LDL contiene ApoB-100 y lípidos oxidables. Una modificación intensa altera el reconocimiento por el receptor LDL clásico, mientras receptores de macrófagos, incluidos CD36 y SR-A, captan partículas oxidadas; en tejido se relaciona con células espumosas. Es contexto patogénico, no prueba de efecto de astaxantina oral sobre placas o eventos. Iwamoto administró astaxantina a voluntarios y luego oxidó LDL aislada con cobre ex vivo, midiendo la latencia de formación de dienos (Iwamoto y cols., 2000). Alargarla significa resistencia de una partícula aislada a un oxidante definido, no menos infartos ni «restauración endotelial» demostrada. Choi midió MDA, isoprostanos, actividad SOD y capacidad antioxidante total en personas con sobrepeso u otra población seleccionada (Choi y cols., 2011; Choi y cols., 2011). Muestra, matriz y análisis limitan extrapolación; los porcentajes originales sin reproducir la tabla primaria no se presentan como universales.
O₂•⁻ + NO• → ONOO⁻ y oxidación de BH₄ explican el desacoplamiento de eNOS: sin cofactor funcional suficiente, la enzima puede generar superóxido en vez de NO. Pero bajar un marcador LPO no prueba restauración de BH₄, acoplamiento eNOS y dilatación mediada por flujo (FMD) por astaxantina en ese participante. Se requieren mediciones directas e intervención controlada. FMD y velocidad de onda de pulso son sustitutos funcionales, no desenlaces cardiovasculares duros demostrados aquí.
Un pequeño estudio aleatorizado de Yoshida comparó varias dosis con placebo durante doce semanas en hipertrigliceridemia leve (Yoshida y cols., 2010). Se discutieron cambios de triglicéridos, HDL-C y adiponectina. No equivalen a tratamiento establecido de «síndrome metabólico»: selección por lípidos no necesariamente implica ese síndrome, y adiponectina es un marcador hormonal, no desenlace clínico independiente. La correlación adiponectina–HDL-C no prueba causalidad por AdipoR1/R2, AMPK, PPARα y ABCA1; harían falta intervenciones en esos nodos y comprobación tisular. La tabla original asigna cambios exactos y valores p sin una tabla primaria contrastada; deliberadamente no se reproducen. Las decisiones clínicas necesitan ensayos independientes que controlen dieta, medicación, comparaciones múltiples y desenlaces predefinidos. Comparar con fármacos hipolipemiantes exige cautela; niacina, lípidos y seguridad muestra por qué HDL-C no garantiza un desenlace.
La fotooxidación puede activar MAPK–AP-1 y expresión de metaloproteinasas; MMP-1 rompe colágeno fibrilar y MMP-2/9 actúan sobre componentes particulares de matriz. El original llama incorrectamente «estromelisina» a MMP-13: es colagenasa-3. En Tominaga las mujeres recibieron simultáneamente producto oral y tópico, de modo que elasticidad, hidratación o arrugas no pueden atribuirse específicamente a astaxantina ingerida; el grupo masculino fue un estudio separado (Tominaga y cols., 2012). Ito aleatorizó a 23 personas sanas con suplemento oral y UV local controlada, midiendo dosis eritematosa mínima (MED), hidratación y TEWL; experimentos celulares MMP-1 son otro nivel (Ito y cols., 2018). MED favorable no sustituye protección solar, demuestra prevención de cáncer ni determina dosis terapéutica dermatológica.
El esfuerzo muscular intenso implica flujo redox mitocondrial y, en ciertas condiciones, señales NOX2. El daño membranal no se reduce a «destrucción de CPT1», ni cambiar CPT1 explica automáticamente mejorar una carrera ciclista. Earnest aleatorizó 21 ciclistas de competición durante 28 días, pero 14 completaron toda la prueba: 7 por grupo. Tras dos horas de ejercicio se observó mejor tiempo en 20 km frente a placebo y cambio de potencia; no hubo efecto sobre oxidación medida de grasas/carbohidratos o marcadores de movilización de combustible, y el mecanismo se describió como incierto (Earnest y cols., 2011). «21 atletas de élite, +15% de potencia por conservar CPT1» exagera la muestra analizada y sustituye un mecanismo pese al resultado negativo. Baralic y Brown, con otros protocolos, son datos independientes; no demuestran acelerar universalmente recuperación, eliminación de lactato o prevención de rabdomiólisis.
Saito incluyó 20 voluntarios sanos y cuatro semanas de astaxantina o placebo; flujografía por moteado láser midió un índice relativo de velocidad sanguínea coroidea (Saito y cols., 2012). Aunque se reproduzca el cambio entre grupos, es un sustituto hemodinámico en ojos sanos, no prueba de paso por barrera hematorretiniana, mejor agudeza visual o tratamiento de degeneración retiniana. Fatiga visual por ordenador y acomodación tienen desenlaces distintos y no deben fusionarse con Saito. Cambiar astenopia subjetiva tampoco confirma un mecanismo ciliar sin fisiología independiente.
H. pluvialis acumula principalmente ésteres de ácidos grasos; extracción, secado y aceite determinan forma libre, isómeros geométricos y lípidos asociados. Levaduras y productos sintéticos pueden diferir estereoquímicamente. La procedencia debe describirse con rasgos verificables: fracción másica, perfil estereoisomérico, esterificación, impurezas oxidativas, estabilidad y formulación. Ni origen «natural» ni materia «petroquímica» miden absorción o beneficio tisular. Afirmar máxima afinidad enterocitaria y acumulación humana demostrada de (3S,3′S) requiere comparación directa de isómeros preparados igual; no está en la base original. Peces y crustáceos obtienen el pigmento alimentándose, no prueban la mejor suplementación.
La forma esterificada necesita liberar astaxantina libre para absorción eficiente; contribuyen bilis e hidrolasas, incluida carboxil éster lipasa en condiciones pertinentes. Lípidos alimentarios sufren emulsificación y lipólisis; micelas mixtas llevan moléculas hidrófobas al borde en cepillo. La captación carotenoide puede incluir SR-BI/SCARB1, CD36 y componentes pasivos, pero un esquema no fija sus proporciones para toda forma. En enterocitos entra en estructuras lipídicas y puede salir con quilomicrones ApoB-48 hacia linfa; remanentes llegan al hígado y el pigmento se distribuye entre lipoproteínas. Pueden ocurrir metabolismo y eliminación. «La vía linfática elimina por completo el primer paso» es excesivo: afecta a parte del material absorbido y al procesamiento hepático posterior. Las fracciones LDL/VLDL/HDL dependen del tiempo posdosis y perfil lipídico; 70–80% uniforme para todos no está respaldado.
Una matriz lipídica favorece disolución y entrega micelar. En Odeberg distintas formulaciones produjeron curvas plasmáticas distintas en humanos (Odeberg y cols., 2003). Cmax es el pico y AUC la exposición integrada en el intervalo medido; dependen de alimento, composición y muestreo. La razón AUC de dos productos no significa «cuatro veces mejor» universal para todo SMEDDS ni función orgánica cuádruple. Liposomas, nanoemulsiones y NLC tienen mecanismos físicos distintos de protección y dispersión; absorción humana de nanopartículas intactas necesita prueba propia. Tampoco puede asignarse BCS a un carotenoide alimentario sin forma farmacéutica definida y medidas de solubilidad/permeabilidad.
La tabla original convierte pautas dispares de estudios pequeños en prescripciones diagnósticas: «antienvejecimiento», deporte, síndrome metabólico, astenopia y disfunción endotelial. No está justificado. Deben compararse dosis, forma, duración, participantes y desenlace dentro de cada trabajo: Ito — UV local en piel sana; Earnest — prueba cicloergométrica con 14 completadores; Yoshida — lípidos/adiponectina; Saito — velocidad coroidea relativa. Ninguno establece curso preventivo permanente, dosis para enfermedad o seguimiento «TAC para protección antioxidante». La pauta exige calidad de evidencia para la finalidad clínica, no extrapolación molecular.
La astaxantina es lipófila: comida y formulación grasa pueden modificar exposición, coherentemente con Odeberg. «Absorción nula en ayunas» es incorrecto: existe secreción biliar sin umbral establecido de 15–20 g de grasa, y el preparado suele contener aceite. No se demostró necesidad de tomarla por la mañana para energía ni superioridad de un aceite alimentario concreto. Aceites de kril/pescado y fosfatidilcolina modifican matriz física, pero no garantizan sinergia de biodisponibilidad ni de resultados clínicos. La interpretación exige comparar productos terminados con igual comida y composición controlada.
Astaxantina, CoQ10, PQQ, luteína, zeaxantina, DHA, EPA y citrulina tienen dianas distintas. CoQ10 transporta electrones respiratorios; astaxantina se estudia como carotenoide membranal. No prueba que una mezcla fija aumente ATP o proteja cardiolipina humana. Luteína/zeaxantina son pigmentos maculares diferentes y no convierten la combinación en terapia retiniana. Citrulina aporta disponibilidad de arginina para NO, pero no corrige automáticamente eNOS desacoplada ni transforma una mezcla en terapia vascular. Interacción exige diseño factorial o comparación con cada componente, farmacocinética y acontecimientos adversos. Véase la lógica específica de CoQ10 y compuestos lipófilos en el artículo sobre coenzima Q10 y polifenoles; proximidad mecanística no es sinergia probada.
La astaxantina no se considera provitamina A típica: no corresponde trasladarle hipervitaminosis por conversión de β-caroteno a retinol. Esto no demuestra seguridad absoluta en hepatopatía, embarazo o cualquier dosis; se requieren datos pertinentes. LD50 o NOAEL murinos no se convierten linealmente en «cientos de gramos seguros para humanos»: importan especie, duración, composición y desenlace. La regulación y usos permitidos de un ingrediente cambian y no equivalen a evidencia terapéutica. Los estudios citados no respaldan imposibilidad absoluta de carotenodermia, ausencia de genotoxicidad en toda condición ni seguimiento analítico obligatorio. No detectar un evento en estudios breves no excluye efectos raros o tardíos. Evaluar a una persona requiere fórmula registrada, medicamentos, embarazo/lactancia y finalidad; aquí no hay curso universal.
La química explica estudiar astaxantina en bicapas y sus reacciones con oxígeno excitado y radicales. Las preguntas mecanísticas más sólidas son orientación y concentración reales en membranas distintas, velocidades de rutas competidoras y conexión entre química local y función celular. Los estudios humanos dan señales limitadas y heterogéneas en sustitutos cutáneos, lipídicos, circulatorios y deportivos; no establecen prevención cardiovascular, tratamiento ocular ni seguridad universal. Pasar a terapia exige comparaciones reproducibles de formas concretas con desenlaces clínicos predefinidos y registro cuidadoso de efectos adversos.
Es una revisión narrativa de astaxantina, ambiente membranal y oxidación lipídica a partir de 18 publicaciones seleccionadas. En la edición del 4 de octubre de 2026 se contrastaron individualmente trabajos clave de ejercicio, provocación UV, microcirculación y farmacocinética. No se dispuso de nuevo acceso íntegro a algunos trabajos mecanísticos: no se afirman ángulos, espesores ni efectos numéricos exactos sin confirmar. No se realizó búsqueda exhaustiva, metaanálisis ni evaluación formal del riesgo de sesgo de cada estudio.
Orientación en bicapa modelo, medida de peroxidación de laboratorio y desenlace clínico son niveles distintos. Los resultados se evalúan según población, formulación, duración y desenlace estudiados. Ensayos pequeños no establecen efecto terapéutico universal; mayor exposición de una forma no demuestra más beneficio clínico.
Es un modelo de orientación posible con extremos polares en ambas interfaces; no hay unión covalente y depende de la membrana.
Modelos y algunos biomarcadores justifican investigar, pero protección orgánica y prevención de enfermedades no están establecidas.
No. Describen protocolos y sustitutos concretos, no una pauta terapéutica validada.
Pueden diferir estereoisómeros, esterificación y matriz; ventaja clínica requiere comparar formas concretas directamente.